Dit protocol presenteert een microscoopcompatibel magnetisch nano-actuatieplatform dat fluorescerende superparamagnetische nanodeeltjes, een gekalibreerde elektromagneet en real-time confocale beeldvorming integreert om Schwann-cellen op afstand en gecontroleerd te stimuleren en hun mechanosensorische responsen dynamisch te monitoren.
Methodenartikel
Magnetisch nano-actuatieplatform voor op afstand regelbare mechanostimulatie van Schwann-cellen met real-time confocale beeldvorming
In dit artikel
Samenvatting
Samenvatting
Mechanische krachten reguleren het cellulaire gedrag op cruciale wijze, maar veel bestaande methoden voor mechanische stimulatie zijn afhankelijk van direct fysiek contact of kunstmatig ontworpen extracellulaire omgevingen, waardoor hun flexibiliteit in dynamische live-cell studies beperkt is. Hier presenteren wij een magnetisch nano-actuatieplatform voor remote, contactloze en controleerbare mechanostimulatie van Schwanncellen in vitro. Deze geïntegreerde opstelling maakt remote magnetische stimulatie en gesynchroniseerde live-cell imaging in dezelfde experimentsessie mogelijk. Dit manuscript beschrijft de preparatie van fluorescerende superparamagnetische nanodeeltjes (SPIONs), optioneel actine-targetende gefunctionaliseerde SPIONs (f-SPIONs), de constructie en kalibratie van een microscoopcompatibel elektromagnetisch stimulatieapparaat, de schatting van magnetische krachten op het niveau van individuele deeltjes en individuele cellen, en de integratie van magnetische actuatie met real-time confocale imaging. Schwanncellen zijn zeer mechanosensitieve gliacellen die essentiële rollen spelen bij de ontwikkeling, het onderhoud en het herstel van perifere zenuwen. Real-time monitoring van hun reacties op mechanische stimulatie is cruciaal voor het begrijpen van hoe mechanische krachten de organisatie van het cytoskelet en het cellulaire gedrag beïnvloeden. Dit platform biedt een reproduceerbare workflow voor het bestuderen van de mechanobiologie van Schwanncellen en kan worden aangepast aan andere mechanisch responsieve celtypen en multicellular systemen.
Inleiding
Mechanische prikkels reguleren een breed scala aan cellulaire processen, waaronder adhesie, migratie, proliferatie, differentiatie en fenotypische plasticiteit1,2,3. Studies in de mechanobiologie hebben aangetoond dat zowel neuronen als gliale cellen een uitgesproken mechanogevoeligheid en responsiviteit vertonen gedurende de ontwikkeling4,5,6,7. Om te onderzoeken hoe cellen krachten waarnemen en daarop reageren, zijn meerdere experimentele benaderingen ontwikkeld, waaronder atomic force microscopy (AFM), micropipet-aspiratie, optische pincetten, kweeksystemen op basis van rek en microfluïdische platforms8,9,10,11,12. Deze technieken hebben de studie van mechanotransductie sterk vooruitgeholpen. Veel van deze methoden vereisen echter direct fysiek contact met cellen of zijn afhankelijk van vooraf gedefinieerde kunstmatige mechanische omgevingen, waardoor ze minder geschikt zijn voor stimulatie op afstand die dynamisch regelbaar en compatibel is met imaging.
Krachtoverbrenging via magnetische nanodeeltjes biedt een alternatieve strategie voor mechanostimulatie op afstand13,14,15,16,17,18. Omdat de meeste biologische weefsels een lage magnetische susceptibiliteit vertonen, kunnen extern aangelegde magnetische velden biologische monsters penetreren zonder direct contact en selectief inwerken op magnetisch responsieve deeltjes die in cellen of weefsels zijn gebracht. In de aanwezigheid van een magnetische veldgradiënt ondervinden deze deeltjes directionele krachten die kunnen worden gebruikt om mechanische perturbaties op subcellulair, cellulair of weefselniveau op te leggen8,9. Deze aanpak is aantrekkelijk omdat deze contactloos is, instelbaar is, compatibel is met live-imaging en potentieel kan worden uitgebreid naar complexere biologische systemen.
Schwanncellen zijn zeer mechanogevoelige gliale cellen19,20 die een cruciale rol spelen bij de ontwikkeling, het onderhoud en het herstel van perifere zenuwen21,22. Dynamische observatie van de reacties van Schwanncellen op fysieke stimulatie is essentieel om te begrijpen hoe kracht de organisatie van het cytoskelet en het celgedrag reguleert. Veel conventionele systemen voor krachtoverdracht zijn echter niet gemakkelijk compatibel met real-time microscopie met een hoge resolutie. Om deze beperking aan te pakken, hebben we een magnetisch nano-actuatieplatform ontwikkeld dat fluorescerende magnetische superdeeltjes (f-SPIONs), die zich richten op het actine-cytoskelet, combineert met een op maat gemaakt elektromagnetisch apparaat dat compatibel is met de tafel van een confocale microscoop, en een kwantitatief kader voor krachtschatting. Deze geïntegreerde opstelling maakt remote magnetische stimulatie en gesynchroniseerde live-cell imaging mogelijk in dezelfde experimentele sessie.
De hier beschreven workflow omvat de preparatie van fluorescerende magnetische superdeeltjes (SPIONs), optionele phalloidine-gebaseerde actin-target functionalisatie om f-SPIONs te genereren, karakterisering van nanodeeltjes, constructie van het elektromagnetische apparaat en veldkalibratie, schatting van de magnetische kracht, en gecombineerde magnetische stimulatie met real-time confocale imaging. Hoewel hier geoptimaliseerd voor Schwann-cellen, kan het platform een praktisch kader bieden voor gerelateerde studies in andere mechanisch responsieve levende systemen.
Protocol
De experimenten die in dit protocol worden beschreven, maakten gebruik van een gevestigde rat-Schwanncellijn (RSC96) en betroffen geen menselijke deelnemers of levende dieren. Deze studie werd uitgevoerd als onderdeel van een breder onderzoeksproject met dierproeven, dat is goedgekeurd door de Commissie voor Dierenwelzijn en Ethiek van het First Hospital of Jilin University (goedkeuringsnummer 2022-0045).
1. Bereiding van fluorescerende magnetische superdeeltjes
- Synthetiseer met oliezuur gecoate Fe₃O₄-nanodeeltjes.
OPMERKING: Met oliezuur gecoate Fe₃O₄-nanodeeltjes werden gesynthetiseerd door thermische decompositie zoals eerder beschreven20,23.- Voeg 2 mmol Fe(acac)₃, 6 mmol oliezuur, 6 mmol oleylamine en 5 mmol 1,2-hexadecaandiol toe aan 20 mL benzyl ether in een reactiekolf.
- Roer het mengsel 15 min onder een stikstofatmosfeer tot een homogene precursoroplossing is verkregen.
- Verhit het mengsel tot 200 °C met een snelheid van 20 °C/min.
- Houd de reactie 30 min lang op 200 °C.
- Verhoog de temperatuur naar 265 °C en laat het mengsel 30 min refluxeren.
- Laat het reactiemengsel op natuurlijke wijze afkoelen tot kamertemperatuur.
- Verzamel de Fe₃O₄-nanodeeltjes via magnetische scheiding.
- Was de nanodeeltjes 3 keer met ethanol.
- Resdispergeer de gezuiverde nanodeeltjes in tolueen.
- Assembleer Fe₃O₄·Cy3.5-superdeeltjes.
OPMERKING: Fe₃O₄·Cy3.5-superdeeltjes werden bereid zoals eerder beschreven20,24,25.- Dispergeer 28 mg met oliezuur gecoate Fe₃O₄-nanodeeltjes in 4 mL tolueen in een driehalsronde bodemkolf van 50 mL.
- Bereid een waterige fase bestaande uit 12,5 mg natriumdodecylsulfaat en 3 mg Cyanine 3.5 (Cy 3.5) in 12,5 mL water.
- Combineer de Fe₃O₄-nanodeeltjessuspensie in tolueen (28 mg in 4 mL; 7 mg/mL) met de waterige surfactant/kleurstofoplossing om een olie-in-water-microemulsie te vormen.
- Meng grondig tot een stabiele emulsie is verkregen.
- Verhit de driehalsronde bodemkolf tot 60 °C en roer continu bij 300 rpm gedurende 6 u.
OPMERKING: Er is geen vacuümevaporatie of rotatie-evaporatieprocedure vereist. - Verdampt het tolueen onder de bovengenoemde omstandigheden om aggregatie van de Fe₃O₄-nanodeeltjes te induceren. Breng met een wegwerppipet een kleine aliquot van de oplossing over in een reageerbuis en laat deze staan. De afwezigheid van fasescheiding geeft aan dat het tolueen volledig is verwijderd.
- Breng de Fe₃O₄·Cy3.5-superdeeltjessuspensie over in centrifugebuizen van 15 mL. Centrifugeer 5 min bij 2.370 × g bij kamertemperatuur om de superdeeltjes te verzamelen, en verwijder voorzichtig het supernatant zonder het pellet te verstoren.
- Resdispergeer het pellet in ultrapuur gedeïoniseerd water en centrifugeer opnieuw 5 min bij 2.370 × g bij kamertemperatuur. Verwijder het supernatant en herhaal de wasprocedure drie keer om resterende vrije Cy3.5-kleurstof en natriumdodecylsulfaat te verwijderen.
- Coat de superdeeltjes met polydopamine (PDA).
OPMERKING: Met polydopamine gecoate superdeeltjes werden bereid zoals eerder beschreven20,26.- Centrifugeer de Fe₃O₄·Cy3.5-superdeeltjessuspensie 5 min bij 2.370 × g bij kamertemperatuur en verwijder het supernatant.
- Resdispergeer het pellet in 10 mM Tris-buffer (pH 8,5).
- Voeg 26 mg dopamine-monomeer toe aan de suspensie.
- Roer het mengsel 3 u bij kamertemperatuur onder alkalische omstandigheden.
- Centrifugeer de suspensie 5 min bij 2.370 × g bij kamertemperatuur.
- Verwijder het supernatant en resdispergeer het pellet in ultrapuur water om Fe₃O₄·Cy3.5@PDA-deeltjes (SPIONs) te verkrijgen.
- Functionaliseer de deeltjes optioneel met phalloidine-Alexa Fluor 350.
OPMERKING: De superdeeltjes werden oppervlakte-gefunctionaliseerd met commercieel verkrijgbaar phalloidine-Alexa Fluor 35020.- Bereid 5 mL waterige oplossing bestaande uit 100 units phalloidine-Alexa Fluor 350.
- Voeg 200 µL Fe₃O₄·Cy3.5@PDA-suspensie met 2 mg deeltjes toe aan de oplossing.
- Roer het mengsel voorzichtig 24 u bij kamertemperatuur.
- Centrifugeer het mengsel 5 min bij 2.370 × g bij kamertemperatuur.
- Verwijder het supernatant en resdispergeer het pellet in gedeïoniseerd water.
- Bewaar de uiteindelijke Fe₃O₄·Cy3.5@PDA@phalloidine (f-SPIONs) formulering lichtbeschermd tot gebruik.
2. Karakterisering van de nanodeeltjes
- Bepaal de morfologie en de grootte.
- Bereid nanodeeltjesmonsters voor voor transmissie-elektronenmicroscopie (TEM) of hoge-resolutie transmissie-elektronenmicroscopie (HRTEM) volgens de instrumentvereisten.
- Verwerf beelden om de algemene partikelmorfologie, de kern-schilstructuur en de gemiddelde diameter te bepalen (Figuur 1).
- Bereid waterige nanodeeltjessuspensies voor dynamische lichtverstrooiing (DLS).
- Meet de hydrodynamische diameter en de polydispersiteitsindex (PDI).
- Vergelijk de resultaten van elektronenmicroscopie en DLS om de uniformiteit van de formulering en het colloïdaal gedrag te beoordelen.
- Bepaal de magnetische eigenschappen.
- Bereid gedroogde of geconcentreerde nanodeeltjesmonsters die geschikt zijn voor analyse met een superconducting quantum interference device (SQUID).
- Registreer magnetische hysteresiscurven bij 300 K.
- Bepaal de verzadigingsmagnetisatie, remanentie en coerciviteit.
- Bevestig dat de deeltjes superparamagnetisch gedrag vertonen met een verwaarloosbare remanentie en coërcitiviteit.
- Bepaal de fluorescentie-eigenschappen.
- Bereid een f-SPION-suspensie voor in ultrapuur gedeïoniseerd water en breng de suspensie over naar een kwartscuvette.
- Registreer fotoluminescentiespectra met behulp van een fluorescentiespectrofotometer.
- Bevestig dat het fluorescentiesignaal detecteerbaar blijft na het wassen en resuspenderen.
- Valideer de actine-geassocieerde lokalisatie bij gebruik van de gerichte formulering.
- Verkrijg RSC96-cellen.
OPMERKING: De in deze studie gebruikte RSC96-cellen, een spontaan getransformeerde rat-Schwanncellijn die is tot stand gekomen door langdurige cultuur van primaire rat-Schwanncellen, zijn verkregen van de Cell Bank of the Chinese Academy of Sciences, Shanghai, China (CSTR: 19375.09.3101RATGNR6) en testten negatief op mycoplasma- en schimmelcontaminatie. Er werd gebruikgemaakt van cellen bij passages 3–10. - Kweek de cellen in Dulbecco’s modified Eagle medium (DMEM) aangevuld met 10% foetaal runderserum (FBS) en 1% penicilline-streptomycine-oplossing (100 U/mL penicilline en 100 µg/mL streptomycine).
- Zaai RSC96-cellen uit bij een dichtheid van 1 × 10⁵ cellen per 35 mm celcultuur-microscopieschaal en kweek deze gedurende 24 u bij 37 °C in een bevochtigde atmosfeer met 5% CO₂ om celadhesie mogelijk te maken.
- Aspireer het bestaande kweekmedium, was de cellen twee keer met fosfaatgebufferde zoutoplossing (PBS) en voeg compleet kweekmedium toe dat bevat 15 µg/mL f-SPION's. Incubeer de cellen gedurende 12 u met f-SPION's.
- Aspireren het kweekmedium en was de cellen twee keer met ijskoud PBS dat 1 mM deferoxamine bevat om niet-geïnternaliseerde deeltjes grondig te verwijderen.
- Verwerf confocale beelden om de intracellulaire distributie van de partikels te evalueren. Stel de beeldparamaters in op een pinhole van 1 Airy-eenheid (AU) en een z-stap van 0.43 µm om optische secties met een hoge resolutie van de intracellulaire structuren te verkrijgen.
- Onderzoek of de partikels een verrijking vertonen in actinie-geassocieerde cellulaire regio's.
- Verkrijg RSC96-cellen.
3. Constructie en kalibratie van het elektromagnetische stimulatieapparaat (Figuur 2)
- Assembleer het elektromagnetische apparaat.
- Construeer een compact elektromagnetisch spoelsysteem met afmetingen die passen op de tafel van de confocale microscoop en de levende-celkamer (Figuur 2A,B).
- Sluit de spoel aan op een regelbare voeding of een externe stroombron.
- Simuleer de gradiënt-magnetische veldomgeving numeriek met COMSOL Multiphysics 4.3b (Figuur 2C,D).
- Bevestig dat de elektromagneet het bijbehorende gradiënt-magnetische veld (GMF) genereert bij verschillende ingangsstromen (Figuur 2G).
- Meet de magnetische fluxdichtheid en kalibreer het gradiënt-magnetische veld.
- Plaats de elektromagneet naast de kweekschaal, waarbij de pooltop in de richting van het centrum van de schaal is gericht en zich op 1 mm van de buitenwand van de schaal bevindt (Figuur 2E,F).
- Handhaaf deze relatieve geometrische configuratie tussen de elektromagneet en de kweekschaal tijdens alle daaropvolgende experimenten met magnetische krachtstimulatie van levende cellen en beeldvorming.
- Gebruik een digitale Gaussmeter om de magnetische fluxdichtheid te meten op vooraf gedefinieerde posities binnen het stimulatieregio, waarbij het positioneringsraster op de bodem van de kweekschaal als ruimtelijke referentie dient.
- Bereken de lokale veldgradiënt op basis van de ruimtelijke verandering in magnetische fluxdichtheid.
- Kalibreer en valideer de numeriek gesimuleerde magnetische veldgradiënt met behulp van de experimenteel gemeten en berekende magnetische veldgradiëntwaarden.
4. Schatting van de magnetische krachten geleverd door het platform.
- Definieer het model voor krachtschatting.
- Gebruik de krachtvergelijking voor magnetische nanodeeltjes in een niet-uniform magnetisch veld27,28:
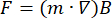
- Vereenvoudig de vergelijking onder de aanname van superparamagnetische uitlijning met het aangelegde veld tot
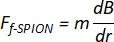
waarbij:
F de nanomagnetische kracht is
m het magnetisch dipoolmoment is
 de magnetische veldgradiënt is
dB/dr de magnetische veldgradiënt (T/m) is die wordt gegenereerd door het overeenkomstige apparaat voor magnetische veldgeneratie. - Gebruik in alle berekeningen de gemeten veldgradiënt van het gekalibreerde apparaat.
- Gebruik de krachtvergelijking voor magnetische nanodeeltjes in een niet-uniform magnetisch veld27,28:
- Schat de kracht in die op een enkel nanodeeltje werkt.
- Bepaal de gemiddelde deeltjesafmetingen aan de hand van HRTEM-beelden.
- Bereken het volume van de magnetische kern uitgaande van een bolvormige geometrie.
- Schat het Fe₃O₄-specifieke magnetische volume op basis van de magnetische fractie van de kern.
- Bereken het magnetisch dipoolmoment volgens
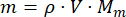
waarbij:
Mm de massamagnetisatie van de f-SPIONs (16 A·m2/kg) vertegenwoordigt onder de gegeven veldintensiteit;
ρ de dichtheid van Fe₃O₄ is (5,24 g/cm3).
V het volume is van de Fe₃O₄ magnetische kern binnen elke f-SPION (5,89 × 10⁻17 cm3). - Vermenigvuldig het dipoolmoment met de gemeten veldgradiënt om de kracht te schatten die op een enkel nanodeeltje werkt (
 ).
- Schat de opname van nanodeeltjes per Schwanncel.
- Zaai RSC96 Schwanncellen uit met 5 × 10⁵ cellen per well in 35 mm microscopie-celkweekschalen.
- Incubeer de cellen gedurende 24 u onder standaard kweekcondities.
- Vervang het medium door vers medium dat 15 µg/mL f-SPIONs bevat.
- Incubeer de cellen nogmaals 12 u.
- Was de cellen twee keer met ijskoude fosfaatgebufferde zoutoplossing die 1 mM deferoxamine bevat.
- Verzamel en tel de cellen.
- Meet het intracellulaire ijzergehalte met behulp van inductively coupled plasma atomic emission spectroscopy (ICP-AES).
- Bereken het aantal geïnternaliseerde deeltjes per cel door de gemiddelde ijzermassa per cel te delen door de ijzermassa per deeltje
 .
- Schat de kracht die op een enkele Schwanncel wordt uitgeoefend.
- Bereken de kracht op celniveau volgens
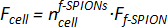
waarbij:
de magnetische kracht is die op een enkele f-SPION wordt uitgeoefend.
 het aantal geïnternaliseerde f-SPIONs per cel is.
Fcell de magnetische kracht is die op een enkele cel wordt uitgeoefend. - Rapporteer de resulterende waarde als de geschatte magnetische kracht die op een enkele Schwanncel wordt uitgeoefend (Fcell).
- Vermeld duidelijk dat de waarde een modelgebaseerde schatting is en geen directe intracellulaire krachtmeting.
- Bereken de kracht op celniveau volgens
5. Combineren van magnetische stimulatie met real-time confocale laserscansmicroscopie (CLSM) beeldvorming
- Laad Schwann-cellen met magnetische nanodeeltjes.
- Zaai Schwann-cellen uit in ibidi-kweekschalen of microfluïdische kweekkamers die geschikt zijn voor imaging.
- Laat de cellen hechten en herstellen.
- Vervang het bestaande medium door vers kweekmedium bevattend 15 µg/mL f-SPIONs.
- Incubeer de cellen 12 u om de f-SPION-lading mogelijk te maken.
- Inspecteer de celmorfologie voordat u verdergaat.
- Verwijder niet-geïnternaliseerde deeltjes.
- Verwijder het medium dat nanodeeltjes bevat.
- Was de cellen tweemaal met PBS bevattend 1 mM deferoxamine.
- Vervang de wasoplossing door live-cell medium dat geschikt is voor imaging.
- Bevestig dat de extracellulaire deeltjesachtergrond laag is vóór de imaging.
- Integreer het elektromagnetische apparaat met het CLSM-imagingsysteem.
- Assembleer het elektromagnet met de live-cell kweekkamer en positioneer het elektromagnet op de vooraf gekalibreerde locatie.
- Plaats de geassembleerde live-cell kweekkamer op de tafel van de confocale microscoop (Figuur 3). Bevestig dat de kweekschaal zich binnen het effectieve stimulatiegelast bevindt (Figuur 3A).
- Activeer het elektromagnet volgens de vooraf ingestelde parameters en bevestig effectieve blootstelling aan het gradiënt magnetisch veld binnen het gebied van de kweekschaal (Figuur 3B).
- Bevestig dat de objectieflens het brandvlak kan bereiken zonder interferentie.
- Bevestig dat het apparaat de positionering van het objectief of de beweging van de tafel niet belemmert.
- Houd rekening met de warmte die tijdens de werking van het elektromagnet wordt gegenereerd en pas de temperatuurinstellingen van de live-cell kamercomponenten aan volgens de vooraf bepaalde optimale kweekcondities om een interne omgeving van 37 °C en 5% CO₂ te garanderen (Figuur 3C).
- Bevestig dat het gehele systeem normaal en stabiel functioneert.
- Functionele Ca2⁺ imaging in levende cellen.
- Incubeer de cellen met Krebs–Ringer-oplossing (pH 7,4) bevattend 3 µM Fluo-4 AM en 0,1% Pluronic F-127 gedurende 30 min bij 37 °C.
- Was de culturen na incubatie tweemaal met PBS en breng ze over naar het live-cell imagingplatform van het CLSM-systeem voor imaging (Figuur 4A).
- Maak gebruik van het positioneringsraster op de bodem van de ibidi-kweekschaal om vijf vooraf gedefinieerde locaties te imagen.
- Verdeel elk imagingveld gelijkmatig in 25 regio's en selecteer 0–3 cellen per regio voor fluorescentiekwantificering, afhankelijk van de werkelijke celdichtheid in die regio.
- Definieer de volledige omtrek van een individuele cel als de region of interest (ROI) en monitor de magnetisch geïnduceerde calciumrespons door veranderingen in fluorescentie-intensiteit (ΔF) binnen de ROI te analyseren.
- Bereken de verandering in fluorescentie-intensiteit als ΔF = (Fstim - F0). Beschouw een verandering in fluorescentie-intensiteit vóór en na stimulatie (ΔF/F0) van meer dan 10% als een calciumrespons-gebeurtenis.
OPMERKING: Funstim vertegenwoordigt de fluorescentie-intensiteit vóór magnetische krachtstimulatie, F0 vertegenwoordigt de basislijn fluorescentie-intensiteit en Fstim vertegenwoordigt de opgewekte fluorescentie-intensiteit na magnetische krachtstimulatie. - Trek voor achtergrondcorrectie de gemiddelde achtergrondfluorescentie-intensiteit, gemeten in een celvrije regio, af van de fluorescentie-intensiteitswaarde van elke ROI.
- Voer drie onafhankelijke experimenten uit, waarbij in elk experiment één kweekschaal wordt opgenomen.
- Voer time-lapse imaging uit en pas magnetische stimulatie toe tijdens de imaging.
- Stel de parameters voor time-lapse imaging als volgt in: een acquisitie-interval van 2,1 s per frame, een totale acquisieduur van 650 s en standaard hoge-resolutie optische sectie-imaging met 1 AU.
- Verkrijg tijdens de cellulaire imaging continu beelden gedurende 50 s zonder stroomtoevoer om de intracellulaire calciumfluorescentie-intensiteit in afwezigheid van magnetische krachtstimulatie (Funstim) vast te leggen (Figuur 2H en Figuur 4B).
- Normaliseer de fluorescentie-intensiteit die tijdens de eerste 50 s is vastgelegd en definieer dit als de basislijn fluorescentie-intensiteit (F0).
- Pas vervolgens een constante stroomtoevoer van 3,0 A toe op het elektromagnet, waardoor de met magnetische nanodeeltjes geladen Schwann-cellen worden blootgesteld aan een gradiënt magnetisch veld van 3,25 T/m en daarmee worden onderworpen aan magnetische krachtstimulatie. Ga door met time-lapse imaging gedurende 10 min om de intracellulaire calciumfluorescentie-intensiteit tijdens magnetische krachtstimulatie (Fstim) vast te leggen (Figuur 2H en Figuur 4C).
- Bereken de verandering in fluorescentie-intensiteit kwantitatief als ΔF/F0 (Figuur 4D,E).
- Voer statistische analyse uit en analyseer Ca2⁺ fluorescentiegegevens.
- Bereken voor elke cel de mediaan ΔF/F₀-waarde over de geanalyseerde tijdreeks en gebruik deze waarde als de Ca2⁺-responsmetriek op celniveau.
- Voer drie onafhankelijke experimenten uit voor elke experimentele conditie, met één kweekschaal per conditie in elk experiment. Voeg de geanalyseerde cellen uit de drie onafhankelijke experimenten samen voor de beschrijvende presentatie en rapporteer n als het totaal aantal geanalyseerde cellen per groep.
- Beoordeel de normaliteit van de ΔF/F₀-gegevens op celniveau met de Kolmogorov-Smirnov toets.
- Omdat de Ca2⁺ fluorescentieresponsgegevens niet normaal verdeeld zijn, worden de gegevens gepresenteerd als de mediaan en het interkwartielbereik (IQR).
- Analyseer verschillen tussen groepen met de non-parametrische Friedman-toets, gevolgd door Wilcoxon-signed-rank toetsen voor paarsgewijze vergelijkingen, zoals eerder gerapporteerd.
- Beschouw P < 0,05 als indicatie voor statistische significantie.
Resultaten
Hoge-resolutie transmissie-elektronenmicroscopie (HRTEM) toonde aan dat de uiteindelijke nanodeeltjesformulering beschikte over een geclusterde magnetische kern en een buitenmantel na oppervlaktemodificatie (Figuur 1). De uiteindelijke f-SPIONs hadden een gemiddelde totale diameter van 63,36 ± 16,65 nm, met een Fe₃O₄-rijke magnetische kern van ongeveer 56,60 ± 6,19 nm en een buitenmantel bestaande uit polydopamine en phalloidine-Alexa Fluor 350 met een gemiddelde dikte van ongeveer 5,79 ± 1,36 nm. Deze resultaten bevestigden de succesvolle constructie van een superdeeltjesarchitectuur die geschikt is voor magnetische activering en fluorescentiegebaseerde visualisatie.
Magnetische hysteresisanalyse toonde aan dat de deeltjes een uitgesproken superparamagnetisch gedrag vertoonden, met verwaarloosbare remanentie en coerciviteit. Onder een aangelegd magnetisch veld van 10.000 Oe (1.0 T) bereikte hun verzadigingsmagnetisatie ongeveer 35 A·m2/kg (Figuur 5). In afwezigheid van een magnetische veldgradiënt vertoonden f-SPIONs een goede disperseerbaarheid in een waterig medium (Figuur 6A). Bij blootstelling aan een gradiëntmagnetisch veld vertoonden f-SPIONs een gevoelige magnetische respons (Figuur 6B). Fluorescentieanalyse bevestigde verder dat de deeltjes hun optische detecteerbaarheid behielden na synthese en oppervlaktemodificatie (Figuur 7).
Het elektromagnetische stimulatiesysteem is succesvol geïntegreerd in het live-cell imaging-systeem (Figuur 3). Kalibratie van het magnetische veld toonde aan dat het apparaat een stabiel gradiëntmagnetisch veld genereerde over het celkweekgebied (Figuur 2E,F), met een in vitro gradiëntmagnetisch veld van ongeveer 3,25 T/m onder de huidige experimentele configuratie (Figuur 2G).
Confocale beeldvorming toonde een efficiënte opname van de fluorescerende magnetische nanodeeltjes in Schwanncellen aan (Figuur 7). Na het wassen bleef het fluorescentiesignaal primair geassocieerd met de cellen in plaats van met vrije deeltjes in het medium. Voor de actine-gerichte formulering toonde confocale beeldvorming verder een verrijking van de deeltjes in actine-geassocieerde cellulaire regio's aan.
Time-lapse confocale beeldvorming demonstreerde dat magnetische stimulatie en live-cell imaging binnen dezelfde experimentele workflow konden worden uitgevoerd, terwijl een stabiele optische toegang tot de cellen gedurende de gehele stimulatieperiode behouden bleef (Figuur 2H en Figuur 4A).
Een kwantitatieve samenvatting koppelde het ontwerp van de nanodeeltjes, de kalibratie van het apparaat en de cellulaire belading verder aan elkaar. Onder het in vitro gradiëntmagnetisch veld van 3,25 T/m werd de magnetische kracht die inwerkt op een enkele f-SPION geschat op ongeveer 1,59 × 10⁻⁵ pN. Op basis van de intracellulaire ijzerkwantificatie internaliseerde elke RSC96 Schwann-cel ongeveer 9,30 ± 2,88 × 10³ deeltjes, wat overeenkomt met een geschatte totale magnetische kracht van ongeveer 0,15 ± 0,05 pN per cel.
Vergeleken met de basisfluorescentie vertoonden RSC96-cellen onder magnetische stimulatie gemedieerd door f-SPIONs actieve Ca2+ dynamiek en significant verhoogde Ca2+ fluorescentiesignalen (Figuur 4D). Kwantitatieve analyse van de Ca2+ fluorescentiesignalen onthulde dat de verandering in Ca2+ fluorescentie-intensiteit (ΔF/F0) binnen RSC96-cellen in de groep met magnetische stimulatie (62,96 [35,07–91,67]) significant hoger was dan in de normale controlegroep (-5,74 [-15,66–1,20]), de f-SPIONs controlegroep (-16,70 [-22,02–-12,00]) en de gradiënt-magnetische veldcontrolegroep (-12,90 [-21,24–-6,97]) (Figuur 4E).
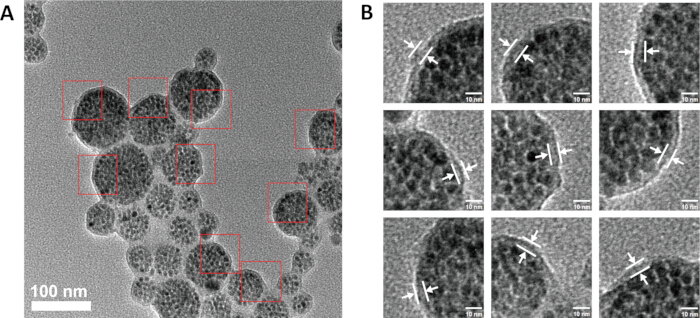
Figuur 1: Morfologie en kern-schilstructuur van f-SPIONs via HRTEM. (A) De f-SPIONs zijn sferisch en vertonen een typische kern-schilstructuur, met een interne magnetische kern bestaande uit Fe₃O₄ nanodeeltjes en Cy3.5. (B) De buitenste schil is opgebouwd uit PDA en phalloïdine-Alexa Fluor 350. De beelden in paneel B tonen representatieve vergrote weergaven van de rood omkaderde gebieden in paneel A, waarbij de witte lijnen en pijlen de gemeten schildikte aangeven. De schaalbalk in paneel B staat voor 10 nm. Er zijn drie onafhankelijke metingen uitgevoerd, waarbij in totaal 680 nanodeeltjes zijn geanalyseerd. Klik hier om een grotere versie van deze figuur te bekijken.
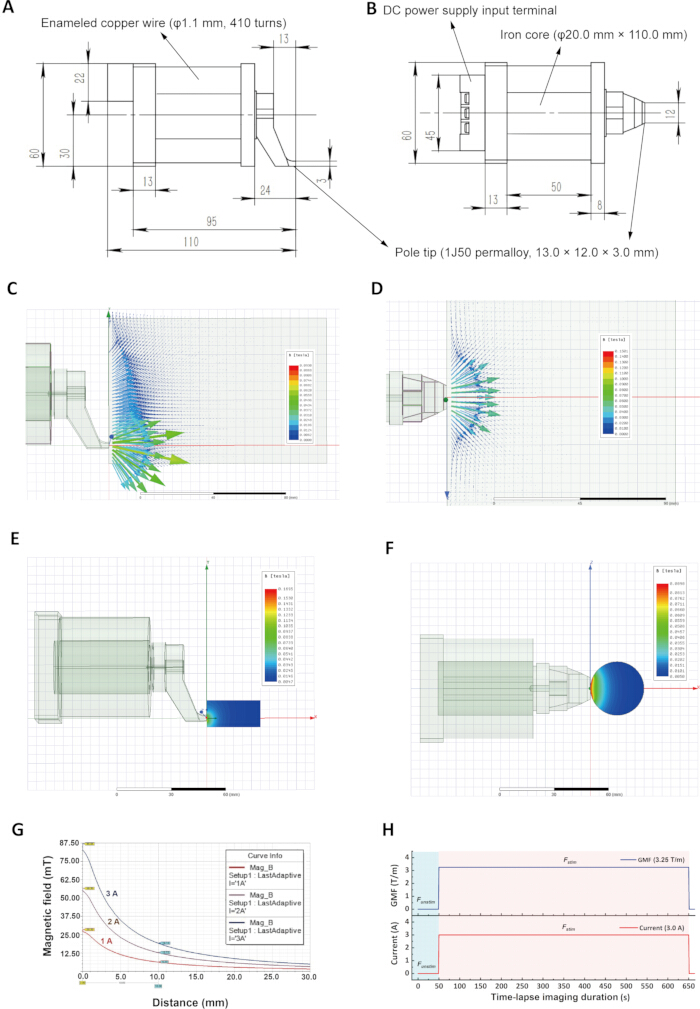
Figuur 2: Constructie, kalibratie en werking van de op maat gemaakte elektromagneet voor magnetische stimulatie van levende cellen. (A,B) De spoel van de elektromagneet werd gewikkeld rond een ijzeren kern met behulp van 1,1 mm geëmailleerde koperdraad, met in totaal 410 windingen. De spoel had een buitendiameter van 60 mm, een binnendiameter van 20 mm, een lengte van 110 mm en een gelijkstroomweerstand van ongeveer 1,2 Ω. De pooltip mat 13,0 mm × 12,0 mm × 3,0 mm (lengte × breedte × hoogte) en werd vervaardigd uit 1J50 permalloy. (C,D) De maximale ingangsstroom van de elektromagneet overschreed 3 A niet. Bij een ingangsstroom van 3 A werd nabij de pooltip een magnetische veldgradiënt van ongeveer 6,7 T/m gegenereerd. (E,F) Distributie van het gradiëntmagnetisch veld binnen de kweekschaal nabij de pooltip bij een ingangsstroom van 3 A. Over het cellulaire beelduitsnedegebied werd een gemiddelde statische magnetische veldgradiënt van ongeveer 3,25 T/m gegenereerd. (G) Magnetische veldgradiënten gegenereerd door de elektromagneet bij verschillende ingangsstromen van 1 A, 2 A en 3 A. (H) Protocol voor time-lapse imaging van levende cellen, stroomtoevoer en blootstelling aan het gradiëntmagnetisch veld in deze studie. Time-lapse beelden werden continu gedurende 50 s verzameld zonder stroomtoevoer. Vervolgens werd een continue constante stroom van 3,0 A toegepast en werd de time-lapse imaging gedurende 10 min voortgezet. DC: Gelijkstroom. GMF: Gradiëntmagnetisch veld. Panelen E, F en G zijn met toestemming aangepast van Liu et al.20. Klik hier om een grotere versie van deze figuur te bekijken.
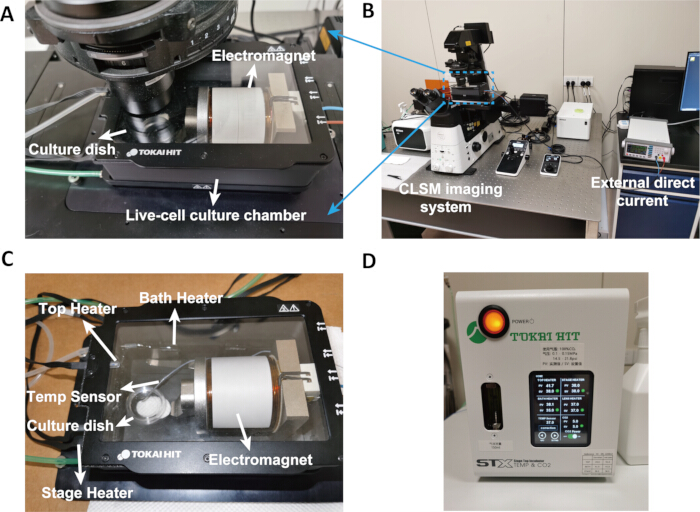
Figuur 3: Integratie van de elektromagneet in de live-cell culturekamer. (A) Een op maat gemaakte compacte elektromagneet, gepositioneerd op de gekalibreerde locatie binnen de live-cell culturekamer voor blootstelling van het gebied van de celkweekschaal aan een gradiënt magnetisch veld. (B) Geïntegreerde opstelling van het CLSM-beeldvormingssysteem, het magnetische nano-actuatieplatform en de externe gelijkstroomvoeding. (C) Optimalisatie van de temperatuurinstellingen voor de individuele componenten van de celkweekkamer waarborgt een stabiele temperatuur binnen de kweekschaal tijdens de werking van de elektromagneet. (D) Temperatuurinstelparameters voor de individuele componenten van de celkweekkamer. CLSM: confocale laser scanning microscopie. PV: Gemeten Waarde. SV: ingestelde Waarde. Top Heater: Temperatuur van de bovenste afdekverwarmer. Stage heater: Verwarmingstemperatuur van de microscooptafel en de bodem van de kweekkamer. Bath heater: Temperatuur van het waterbad. Lens heater: Temperatuur van de objectieflensverwarmer. Temp sensor: Werkelijke temperatuur gemeten door de temperatuursensor. Klik hier om een grotere versie van deze figuur te bekijken.
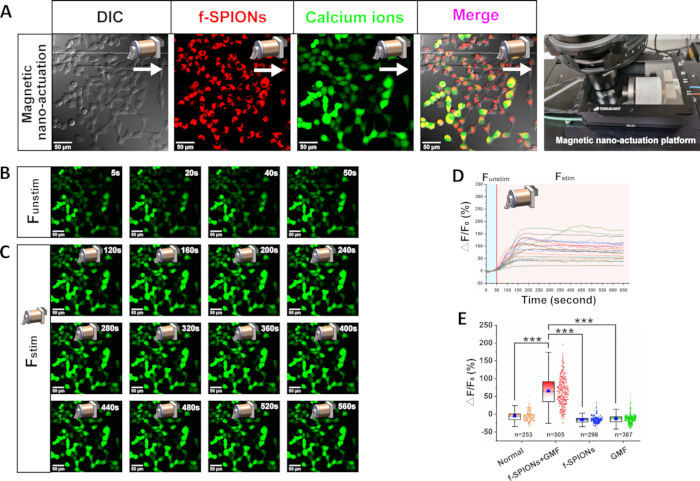
Figuur 4: Representatieve beelden van calciumresponsen in Schwann-cellen onder magnetische krachtstimulatie. (A) Geïntegreerde workflow voor magnetische stimulatie en live-cell Ca2+ imaging in het magnetische nano-actuatieplatform. (B) Baseline Ca2+ fluorescentiebeeld verkregen vóór magnetische stimulatie (Funstim). (C) Ca2+ fluorescentiebeeld verkregen na magnetische stimulatie (Fstim), waarbij de verandering in fluorescentie-intensiteit (ΔF) zichtbaar is. (D) Tijdsopgeloste Ca2+ signaalsporen gemonitord vóór en na magnetische stimulatie. (E) Kwantitatieve analyse en vergelijking van veranderingen in Ca2+ fluorescentie (ΔF/F₀) tussen de verschillende experimentele groepen. DIC: Differential Interference Contrast. Funstim: de fluorescentie-intensiteit vóór magnetische krachtstimulatie. F0: de baseline fluorescentie-intensiteit. Fstim: de opgewekte fluorescentie-intensiteit na magnetische krachtstimulatie. ΔF: de verandering in fluorescentie-intensiteit. “Normal” staat voor de normale controlegroep, “f-SPIONs+GMF” staat voor de magnetische nano-actuatiegroep, “f-SPIONs” staat voor de f-SPIONs controlegroep, en “GMF” staat voor de gradiënt-magnetisch veld controlegroep. Er werden drie onafhankelijke experimenten uitgevoerd, met één kweekschaal per experimentele conditie in elk experiment. Voor elke cel werd de mediane ΔF/F₀-waarde over de geanalyseerde tijdserie gebruikt als responsmetriek op celniveau. Gegevens worden gepresenteerd als de mediaan en interkwartielafstand (IQR), en n geeft het totaal aantal geanalyseerde cellen over de drie onafhankelijke experimenten aan. Statistische analyse werd uitgevoerd met de Friedman-test gevolgd door de Wilcoxon signed-rank test, zoals eerder beschreven in Liu et al. De kwantitatieve gegevens in paneel E zijn met toestemming aangepast uit Liu et al.20. Klik hier om een grotere versie van deze figuur te bekijken.
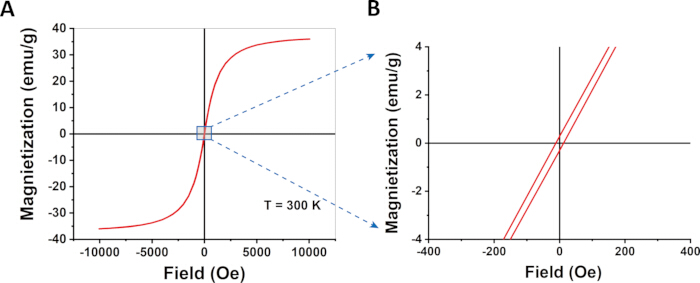
Figuur 5: Superparamagnetische eigenschappen van f-SPIONs. (A) Magnetische hysteresislus van f-SPIONs, die typisch superparamagnetisch gedrag vertoont. (B) Vergroot beeld van de hysteresislus nabij nul magnetisch veld. Klik hier om een grotere versie van deze figuur te bekijken.
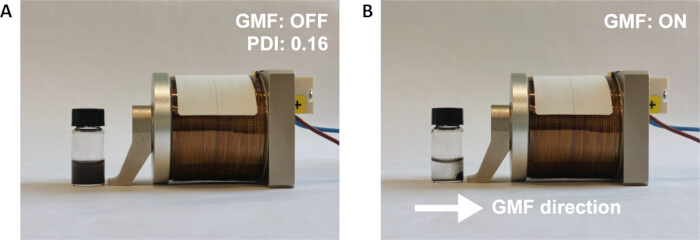
Figuur 6: Waterige disperseerbaarheid en respons op een gradiëntmagnetisch veld van f-SPIONs. (A) In afwezigheid van een gradiëntmagnetisch veld blijven de f-SPIONs goed gedispergeerd in het waterige medium. (B) Wanneer het gradiëntmagnetische veld wordt aangelegd, migreren de f-SPIONs snel en hopen ze zich op langs de richting van de veldgradiënt. GMF: Gradiëntmagnetisch veld. PDI: Polydispersiteitsindex. De pijl geeft de richting van het gradiëntmagnetische veld aan. Klik hier om een grotere versie van deze figuur te bekijken.
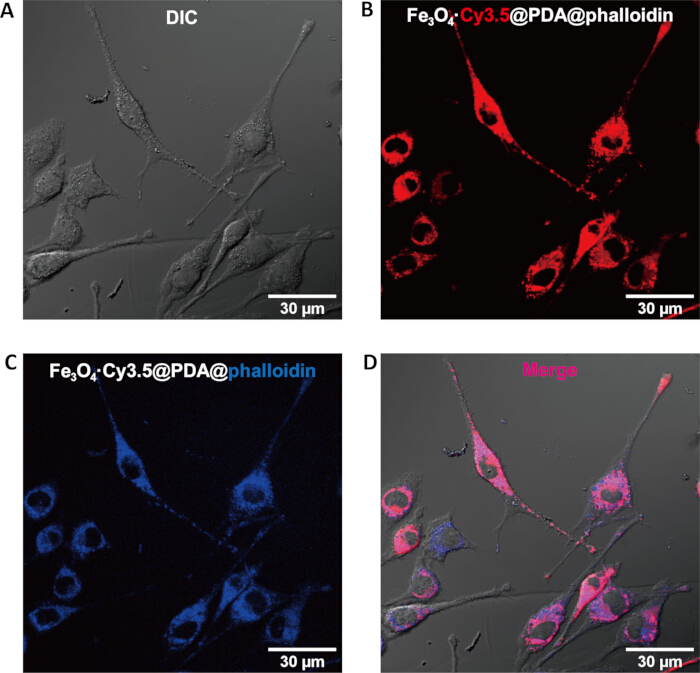
Figuur 7: CLSM-fluorescentiebeeldvorming van f-SPION-internalisatie in Schwanncellen. (A) CLSM-beeldvorming van Schwanncellen na co-incubatie met f-SPIONs (15 µg/mL) gedurende 12 h en daaropvolgend wassen (pinhole = 1 AU; z-stap = 0.43 µm), waarbij een behouden celmorfologie en een minimale extracellulaire achtergrond van deeltjes zichtbaar zijn. (B) Rode fluorescentie gedetecteerd in het Cy3.5-kanaal (Ex/Em: 561–568/607 nm), wat wijst op de aanwezigheid van Cy3.5-gelabelde f-SPIONs binnen de Schwanncellen. (C) Blauwe fluorescentie gedetecteerd in het Alexa Fluor 350-kanaal (Ex/Em: 350–360 nm/440–460 nm), wat de succesvolle incorporatie van de phalloïdine-Alexa Fluor 350-functionalisatiemodule ondersteunt. (D) Merged beeld dat een aanzienlijke ruimtelijke overlap toont tussen de rode en blauwe fluorescentiesignalen, wat consistent is met de succesvolle constructie van de magnetisch-fluorescerende superdeeltjes. DIC: Differential interference contrast. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
IJzeroxide-nanodeeltjes worden algemeen erkend als magnetische nanomaterialen met een gunstige biocompatibiliteit. Als veelgebruikte contrastmiddelen voor magnetische resonantiebeeldvorming zijn superparamagnetische Fe₃O₄-nanodeeltjes uitgebreid toegepast in de klinische beeldvormingsdiagnostiek29,30. In een recente studie van onze groep20 werd aangetoond dat f-SPIONs een extreem lage cytotoxiciteit en een uitstekende biosafety vertonen. Het nanomagnetische actuatieplatform, geconstrueerd met f-SPIONs als mechanische actuatoren in combinatie met een regelbare elektromagnet, activeerde effectief de cytoskeletdynamiek in Schwann-cellen, induceerde de opening van het mechanosensitieve Piezo1-ionkanaal, triggerde de transmembraan Ca2⁺-instroom en bevorderde vervolgens de "herprogrammering" van de genexpressie en fenotypische veranderingen in de cellen20.
Verschillende stappen zijn bijzonder belangrijk voor de succesvolle implementatie van dit platform. De eerste kritieke stap is de preparatie van de nanodeeltjes. De deeltjes moeten na synthese en oppervlaktemodificatie goed gedispergeerd, magnetisch responsief en optisch detecteerbaar blijven. Aggregatie in elke fase kan de consistentie van de cellulaire opname verminderen, de effectieve magnetische eigenschappen veranderen en de kwaliteit van de live-cell imaging beïnvloeden.
De tweede kritieke stap is de procedure voor het cellulair laden en wassen. De nanodeeltjesconcentratie en de incubatietijd moeten voldoende zijn om een detecteerbare intracellulaire lading te produceren zonder overmatige extracellulaire accumulatie te veroorzaken of de celmorfologie in gevaar te brengen. Grondige verwijdering van niet-geïnternaliseerde en membraangebonden deeltjes is essentieel, met name wanneer fluorescentie-imaging wordt gebruikt om de intracellulaire lokalisatie te evalueren. Onvoldoende wassen kan leiden tot een verkeerde interpretatie van lokalisatiepatronen en kan ook de krachtschattingen op celniveau vervormen.
De derde kritische stap is de geometrische uitlijning van het magnetische stimulatiesysteem ten opzichte van het monster. Omdat de magnetische kracht direct afhangt van de lokale veldgradiënt, moet de relatieve positie van de elektromagnetische spoel en het monsteroppervlak consistent blijven met de kalibratieconfiguratie. Zelfs kleine veranderingen in de afstand tussen de spoel en het monster of in de uitlijning kunnen de effectieve stimulatiecondities beïnvloeden.
Het platform kan worden aangepast aan de biologische vraag die wordt onderzocht. Wanneer algemene magnetische belading en krachtoverbrenging volstaan, kunnen de PDA-gecoate fluorescerende superpartikels (SPIONs) worden gebruikt zonder actin-gerichte functionalisering. Wanneer subcellulaire lokalisatie nabij actinerijke regio's gewenst is, kan in plaats daarvan de phalloïdine-gefunctionaliseerde formulering (f-SPIONs) worden gebruikt. Deze modulariteit is een praktisch voordeel van het platform.
De huidige techniek kent verschillende beperkingen. Ten eerste is het berekende aantal magnetische deeltjes dat per cel wordt opgenomen een gemiddelde waarde van de populatie, terwijl de belading met deeltjes op single-cell niveau onvermijdelijk heterogeniteit vertoont. Ten tweede zijn de in deze studie gerapporteerde waarden voor de magnetische kracht modelgebaseerde schattingen in plaats van directe metingen van intracellulaire mechanische belastingen. Ten derde is dit protocol primair ontworpen en ontwikkeld voor Schwann-cellen die zijn gekweekt onder in vitro beeldvormingscondities. In dichte driedimensionale celcultuursystemen en weefsels kan aanzienlijke optimalisatie vereist zijn, omdat de opname van nanodeeltjes, de intracellulaire distributie, de optische toegankelijkheid en de mechanische koppeling kunnen afwijken van die in tweedimensionale culturen. Ten slotte verhoogt de optionele strategie voor actinestargeting de kans op lokalisatie van deeltjes in actine-geassocieerde regio's, maar garandeert het geen uniforme of specifieke targeting van alle actinerijke structuren binnen levende cellen.
Ondanks deze beperkingen biedt het huidige platform voor magnetische nano-actuatie verschillende duidelijke methodologische voordelen ten opzichte van bestaande technieken voor krachtoverdracht. Atomaire krachtmicroscopie (AFM) maakt bijvoorbeeld een nauwkeurige, gelokaliseerde krachttoepassing mogelijk, maar vereist direct mechanisch contact met het doelwit en is niet altijd eenvoudig te integreren met langetermijn live-cell imaging8. Op rek gebaseerde systemen en gemanipuleerde substraten kunnen mechanische signalen leveren op het niveau van de celpopulatie, maar zij zijn afhankelijk van vooraf gedefinieerde materiaalgrensvlakken en zijn minder geschikt voor remote intracellulaire krachtoverdracht10. Optische pincetten bieden een hoge ruimtelijke resolutie voor krachttoepassing, maar brengen risico's met zich mee wat betreft door lasers geïnduceerde weefselschade8. Methoden op basis van micropipetten zijn relatief eenvoudig in gebruik, maar hebben een relatief lage doorvoersnelheid en krachtresolutie12. Microfluïdische systemen zijn voordelig voor het creëren van specifieke mechanische micro-omgevingen, zoals schuifspanning en vloeistofdruk, maar kampen met technische uitdagingen bij het reproduceren van complexe cellulaire omgevingen en het integreren van meerdere modi van mechanische stimulatie11. In tegenstelling hiermee integreert het huidige platform remote, contactloze stimulatie, controleerbare magnetische actuatie, fluorescentie-gebaseerde partikeltracking en directe compatibiliteit met real-time confocale imaging binnen één enkele workflow.
Dezelfde algemene strategie kan worden aangepast aan andere mechanisch responsieve celtypen en complexere biologische modellen. Het kan mogelijk ook worden uitgebreid naar dichtere multicellular systemen, zoals neurale organoïden, epitheliale cysten of Madin-Darby canine kidney (MDCK)-achtige epithelia. In dergelijke omgevingen zou extra optimalisatie vereist zijn voor de penetratie van deeltjes, de distributie van deeltjes en de krachtschatting in mechanisch gekoppelde driedimensionale monsters. Ondanks deze uitdagingen biedt de huidige workflow een praktische basis voor de bredere ontwikkeling van magnetomechanische stimulatiestrategieën in levende systemen.
Openbaarmakingen
De auteurs verklaren geen concurrerende financiële belangen te hebben.
Dankbetuigingen
Dit werk werd ondersteund door de National Natural Science Foundation of China (subsidienummers 82571677 en 82001304 aan Y.W.), het Special Program for Medical and Health Care Talents in Jilin Province (subsidienummer JLSRCZX2025-134 aan Y.W.) en het Bethune Program Project van Jilin University (subsidienummer 2024B19 aan Y.W.). De auteurs danken de College of Chemistry, Jilin University (State Key Laboratory of Supramolecular Structure and Materials), en het Changchun Institute of Applied Chemistry, Chinese Academy of Sciences, voor hulp bij het ontwerp, de synthese en de karakterisering van nanomaterialen. De auteurs danken daarnaast het Institute of Translational Medicine at The First Hospital of Jilin University voor hulp bij CLSM-beeldvorming.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1,2-hexadecaandiol | Sigma-Aldrich | 213748 | Technische kwaliteit, 90%; gebruikt bij thermische decompositie-synthese |
| 35 mm ibidi µ-schalen | ibidi | 80156 | Gebruikt voor Schwanncelkweek en imaging |
| benzylesther | Sigma-Aldrich | 108014 | 98%; oplosmiddel voor Fe3O4 nanopartikelsynthese |
| Confocale laserscanningmicroscoop | Nikon | AXR (Ti2-E) | Gebruikt voor live-cell imaging en fluorescentie-imaging |
| Op maat gemaakte elektromagneet | Op maat gemaakt | Omdat er geen brontekst is verstrekt, kan er geen vertaling worden gemaakt. Voeg alstublieft de Engelse tekst toe die u wilt laten vertalen naar het Nederlands. | Compact unipolaire elektromagneet voor in vitro generatie van gradiëntmagneetvelden |
| Cyanine3.5-carbonzuur | Duofluor Inc. | D10128 | Fluorescente kleurstof gebruikt voor Fe3O4·Assemblage van Cy3.5-superdeeltjes; MG 593,20; bewaren bij -20 °C, beschermd tegen licht |
| Deferoxamine-mesylaatzout | Sigma-Aldrich | D9533 | IJzerchelatiemiddel gebruikt voor het verwijderen van niet-geïnternaliseerd en membraangeassocieerd ijzer |
| Digitale Gaussmeter | WEITE MAGNETISCH | WT103 | Wordt gebruikt om de magnetische fluxdichtheid te meten en het gradiëntmagnetisch veld dat door de op maat gemaakte elektromagneet wordt gegenereerd te kalibreren |
| Dopaminehydrochloride | Sigma-Aldrich | H8502 | ≥98% (TLC); gebruikt voor polydopamine-coating |
| Instrument voor dynamische lichtverstrooiing | Malvern Instruments | Zetasizer Nano-ZS | Gebruikt voor de meting van de hydrodynamische diameter en de PDI |
| Fluo-4 AM | Invitrogen, Thermo Fisher Scientific | F14201 | Calciumindicator gebruikt voor live-cell Ca2+2+ beeldvorming |
| Fluorescentiespectrofotometer | Shimadzu | RF-6000 | Gebruikt voor fotoluminescentiekarakterisering |
| Hoge-resolutie transmissie-elektronenmicroscoop | JEOL | JEM-F200 | Gebruikt voor HRTEM-imaging van de morfologie en de kern van nanodeeltjes–schaalstructuur |
| Inductief gekoppeld plasma-atoomemissiespectrometer | PerkinElmer | Optima 3300 DV | Gebruikt voor intracellulaire ijzerkwantificering |
| IJzer(III)acetylacetonaat, Fe(acac)3 | Sigma-Aldrich | F300 | 97%; precursor voor Fe3O4 synthese van nanodeeltjes |
| Live-cell stage-top incubator | TOKAI HIT | TENP&CO2 | Gebruikt voor confocale live-cell imaging tijdens magnetische stimulatie |
| Koolzuur | Sigma-Aldrich | O1008 | ≥99% (GC); oppervlakteligand voor Fe3O4 nanodeeltjessynthese |
| Oleylamine | Sigma-Aldrich | O7805 | Technische kwaliteit, 70%; ligand voor nanodeeltjessynthese |
| Falloidine–Alexa Fluor 350 | Invitrogen, Thermo Fisher Scientific | A22281 | Optioneel functionaliseringsreagens gericht op actine |
| Pluronic F-127 | Invitrogen, Thermo Fisher Scientific | P3000MP | Gebruikt om de Fluo-4 AM-loading voor live-cell Ca2+ beeldvorming te vergemakkelijken2+ beeldvorming |
| Programmeerbare gereguleerde DC-stroomvoeding | Tongmen | eTM-L605SPL (60 V, 5 A) | Gebruikt voor de voeding van de aangepaste elektromagneet voor de in vitro generatie van gradiëntmagnetische velden |
| RSC96 Schwann-cellen | Cellbank van de Chinese Academie van Wetenschappen | Omdat er geen brontekst is verstrekt, kan er geen vertaling worden gemaakt. Voer aub de tekst in die u vertaald wilt hebben. | Ratten-afgeleide Schwann-cellijn |
| Natriumdodecylsulfaat (SDS) | Sigma-Aldrich | 436143 | ACS-reagens, ≥99,0%; surfactant voor olie-in-water microemulsie |
| SQUID-magnetometer | Quantum Design Inc. | MPMS-XL | Gebruikt voor magnetische hysteresismeting bij 300 K |
| Tolueen | Sigma-Aldrich | 244511 | Watervrij, 99,8%; oplosmiddel voor superparticle-assemblage |
| Transmissie-elektronenmicroscoop | FEI | EP 5018/40, Tecnai Spirit Biotwin | Gebruikt voor de observatie van de ultrastructuur van cellulaire en neurale weefsels |
Referenties
- Cheng B, et al. Mechanobiology across timescales. Nat Rev Phys. 2025;7:621-44.
- Di X, et al. Cellular mechanotransduction in health and diseases: from molecular mechanism to therapeutic targets. Signal Transduct Target Ther. 2023;8:282.
- Pillai EK, Franze K. Mechanics in the nervous system: from development to disease. Neuron. 2024;112(3):342-61.
- Franze K. The mechanical control of nervous system development. Development. 2013;140(15):3069-77.
- Franze K, Guck J. The biophysics of neuronal growth. Rep Prog Phys. 2010;73:094601.
- Moore SW, Sheetz MP. Biophysics of substrate interaction: influence on neural motility, differentiation, and repair. Dev Neurobiol. 2011;71(11):1090-101.
- Franze K, Janmey PA, Guck J. Mechanics in neuronal development and repair. Annu Rev Biomed Eng. 2013;15:227-51.
- Sun W, et al. Biophysical approaches for applying and measuring biological forces. Adv Sci (Weinh). 2022;9(5):e2105254.
- Mohammed D, et al. Innovative tools for mechanobiology: unraveling outside-in and inside-out mechanotransduction. Front Bioeng Biotechnol. 2019;7:162.
- Constantinou I, Bastounis EE. Cell-stretching devices: advances and challenges in biomedical research and live-cell imaging. Trends Biotechnol. 2023;41:939-50.
- Polacheck WJ, Li R, Uzel SGM, Kamm RD. Microfluidic platforms for mechanobiology. Lab Chip. 2013;13(12):2252-67.
- Li Z, et al. Non-invasive acquisition of mechanical properties of cells via passive microfluidic mechanisms: a review. Biomicrofluidics. 2021;15(3):031501.
- Xiao Y, Du J. Superparamagnetic nanoparticles for biomedical applications. J Mater Chem B. 2020;8(3):354-67.
- Yang X, et al. Nanotechnology enables novel modalities for neuromodulation. Adv Mater. 2021;33(52):e2103208.
- Semeano AT, et al. Effects of magnetite nanoparticles and static magnetic field on neural differentiation of pluripotent stem cells. Stem Cell Rev Rep. 2022;18(4):1337-54.
- Lee B, et al. Design of oxide nanoparticles for biomedical applications. Nat Rev Mater. 2025;10:252-67.
- Kim YJ, et al. Magnetoelectric nanodiscs enable wireless transgene-free neuromodulation. Nat Nanotechnol. 2025;20:121-31.
- Signorelli L, Hescham SA, Pralle A, Gregurec D. Magnetic nanomaterials for wireless thermal and mechanical neuromodulation. iScience. 2022;25(11):105401.
- Liu T, Wang Y, Lu L, Liu Y. SPIONs-mediated magnetic actuation promotes nerve regeneration by inducing and maintaining repair-supportive phenotypes in Schwann cells. J Nanobiotechnology. 2022;20:159.
- Liu T, et al. f-SPION-mediated magnetic stimulation induces reparative Schwann cell reprogramming via cytoskeletal dynamics-gated activation of Piezo1. J Nanobiotechnology. 2026;24:298.
- Jessen KR, Mirsky R, Lloyd AC. Schwann cells: development and role in nerve repair. Cold Spring Harb Perspect Biol. 2015;7(7):a020487.
- Jessen KR, Mirsky R. The repair Schwann cell and its function in regenerating nerves. J Physiol. 2016;594(13):3521-31.
- Sun S, Zeng H. Size-controlled synthesis of magnetite nanoparticles. J Am Chem Soc. 2002;124(28):8204-5.
- Zhuang J, Wu H, Yang Y, Cao YC. Controlling colloidal superparticle growth through solvophobic interactions. Angew Chem Int Ed Engl. 2008;47(12):2208-12.
- Bai F, et al. A versatile bottom-up assembly approach to colloidal spheres from nanocrystals. Angew Chem Int Ed Engl. 2007;46(35):6650-3.
- Tang L, et al. Investigating the optimal size of anticancer nanomedicine. Proc Natl Acad Sci U S A. 2014;111(43):15344-9.
- Tay A, Kunze A, Murray C, Di Carlo D. Induction of calcium influx in cortical neural networks by nanomagnetic forces. ACS Nano. 2016;10(2):2331-41.
- Tay A, Di Carlo D. Magnetic nanoparticle-based mechanical stimulation for restoration of mechano-sensitive ion channel equilibrium in neural networks. Nano Lett. 2017;17(2):886-92.
- Cheng FY, et al. Characterization of aqueous dispersions of Fe(3)O(4) nanoparticles and their biomedical applications. Biomaterials. 2005;26(7):729-38.
- Lee N, et al. Iron oxide-based nanoparticles for multimodal imaging and magnetoresponsive therapy. Chem Rev. 2015;115(19):10637-89.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar