Peulvruchten gaan een partnerschap aan met de bodem bacteriën die wortelknolletjes vormen waarin de bacteriën atmosferische stikstof fixeren voor gebruik door de plant. MicroCT maakt niet-destructieve 3D-beeldvorming mogelijk van de weefselorganisatie, bacteroïdezones en vaatbundels van dit ondoorzichtige, harde weefsel van de wortelknolletjes, wat voordelen biedt ten opzichte van traditionele beeldvormingstechnieken waarbij het doorsnijden van de knolletjes noodzakelijk is.
Methodenartikel
3D MicroCT-beeldvorming van Medicago sativa-wortelknolletjes
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
De symbiotische relatie tussen de vlinderbloemige Medicago sativa en de bodembacterie Sinorhizobium meliloti resulteert in de vorming van stikstofbindende wortelknolletjes. Traditionele destructieve methoden, waaronder paraffine-insnijding, vibratoom-insnijding en cryosectie, zijn toegepast om te visualiseren hoe bacteriën de knolletjes bezetten, waardoor het uiterst moeilijk is om betrouwbare driedimensionale informatie te verkrijgen. Deze benaderingen worden vaak gecombineerd met fluorescente markering of kleuring, wat extra stress kan veroorzaken die de plantengroei en knollevorming beïnvloedt. MicroCT is ontstaan als een relatief snel, eenvoudig en robuust instrument voor de plantbiologie waarmee plantenhistologische kenmerken niet-destructief in drie dimensies (3D) kunnen worden gevisualiseerd, waardoor destructieve artefacten tijdens de monstervoorbereiding worden vermeden en een getrouwe 3D-reconstructie wordt gegarandeerd. Hoewel microCT is toegepast op wortelknolletjes van vlinderbloemigen, ontbreekt een gedetailleerd vastgesteld protocol dat het proces documenteert van de plantenoogst en monstervoorbereiding tot het scannen en de softwarevisualisatie.
In deze studie presenteren we een stapsgewijze microCT-workflow met Medicago sativa als model. Het protocol omvat het excideren van wortelknolletjes, fixatie, contrastverbetering, montage, scanning en driedimensionale reconstructie. Kritieke parameters die elementen zoals beeldkwaliteit, weefselbehoud en contrast beïnvloeden, worden belicht. Met deze aanpak is het mogelijk om de algemene weefselorganisatie, bacterioïde-geïnfecteerde cellen en vaatbundels in drie dimensies te visualiseren zonder de knolletjes fysiek in plakken te snijden. De hier beschreven pipeline biedt een reproduceerbare methode voor niet-destructieve, hoge-resolutie beeldvorming van natuurlijke wortelknolletjes en is waarschijnlijk aanpasbaar voor andere vlinderbloemige soorten, waardoor onderzoekers een praktisch instrument krijgen voor het bestuderen van de knolstructuur en de bacteriële organisatie binnen knolletjes in 3D.
Inleiding
Planten uit de familie Leguminosae (of Fabaceae), zoals Medicago sativa (alfalfa), vormen een symbiotische relatie met stikstofbindende bodembacteriën uit de familie Rhizobiaceae, zoals Sinorhizobium meliloti, wat resulteert in de ontwikkeling van wortelknolletjes. De plant scheidt flavonoïden af om de bacteriën aan te trekken onder stikstofbeperkte omstandigheden. Dit activeert de expressie van Nod-factoren in de symbiotische bacteriën, wat leidt tot het krullen van wortelharen en de daaropvolgende vorming van een infectiekamer rondom de bacteriën1,2,3,4. Een infectiedraad vormt zich vanuit een verzwakt gedeelte van de wand van de kamer, waardoor een verlengende buis ontstaat die de bacteriën door de wortelhaarcel transporteert5. Wanneer de infectiedraad de binnenste cortex bereikt, initieert een reeks celdelingen de vorming van een gespecialiseerd wortelorgaan, het wortelknolletje genoemd1,2,5. De bacteriën infecteren vervolgens de cel van het knolletje en leven intracellulair, omringd door het symbiosomaal membraan binnen de cel. Hier voorziet de plant de bacteriën van koolstof en andere voedingsstoffen. In ruil daarvoor fixeren de bacteriën stikstof voor de plant, waarbij onbruikbare atmosferische stikstof wordt omgezet in ammoniak, een voor de plant bruikbare vorm2,3,4. Zo functioneert het wortelknolletje als een vitale biologische fabriek voor stikstoffixatie, die plantengroei ondersteunt, zelfs in afwezigheid van synthetische stikstofmeststoffen. Dit proces van biologische stikstoffixatie is economisch en ecologisch belangrijk omdat het vlinderbloemigen in staat stelt te groeien zonder synthetische meststoffen6. Bovendien vormen sommige vlinderbloemigen onbepaalde knolletjes met duidelijke zones waarin bacteriën differentiëren en stikstof efficiënter fixeren4. Daarom is het belangrijk om zowel de buitenkant als de binnenkant van het knolletje (waar de bacteriën fysiek plantencellen binnen het knolletje bezetten) te visualiseren om biologische stikstoffixatie in detail te bestuderen. Echter is het een opaak orgaan gevuld met het roodgekleurde planteneiwit leghemoglobine, wat traditionele beeldgevingsmethoden bemoeilijkt.
In het verleden gebruikte beeldvormingstechnieken waren destructief. Paraffine-doorsnijding, vibratome-doorsnijding en cryosectie zijn gebruikt om weefselsneden te produceren, maar deze verstoren de natuurlijke staat van het weefsel en introduceren artefacten die driedimensionale (3D) reconstructie bemoeilijken6,7,8,9,10. Reconstructie uit in paraffine ingebedde noduleweefselsneden is succesvol voltooid, maar hiervoor worden gedehydrateerde monsters gebruikt en zijn meer dan 200 individuele coupes nodig8. In individuele coupes kunnen delen van het vaatstelsel worden waargenomen, maar niet hoe de bundels zich splitsen en rond de nodule wikkelen. Verschillende fluorescente labelings- en kleuringstechnieken zijn uitgevoerd op weefselsneden voorafgaand aan confocale microscopie, maar deze vertonen doorgaans de volgende problemen8,9,10: (i) Plantnoduleweefsel is sterk autofluorescent, (ii) veel methoden vereisen weefselklaring voorafgaand aan de beeldvorming, (iii) fluorescente kleuring kan noduleweefsel beschadigen, iv) het inoculeren van planten met green fluorescent protein (GFP)-gelabelde bacteriën introduceert stress die zowel de plantengroei als de nodulevorming beïnvloedt, en v) natuurlijke nodules zijn te groot om het gehele monster eenvoudig in coupes te snijden5,11.
Computed tomography (CT)-beeldvorming wordt veelvuldig ingezet in medische omgevingen voor zowel diagnostische als therapeutische doeleinden12,13. Een kleinere variant hiervan, röntgen-microtomografie (MicroCT), is een beeldvormingstechniek die niet-destructieve driedimensionale (3D) visualisatie van kleine objecten mogelijk maakt. Waar CT de machine rondom het grotere object laat roteren, roteert MicroCT het kleinere object dicht bij de röntgenbron. Dit maakt een veel hogere resolutie mogelijk. MicroCT is toegepast in de ontwikkelingsbiologie van dieren, maar is ook opgekomen als een veelbelovend instrument in de plantbiologie6,10,14,15,16,17,18,19. Belangrijk is dat MicroCT en synchrotron-gebaseerde röntgentomografie uitgebreid zijn gebruikt in de plantenfysiologie om xyleemembolieën te onderzoeken en om beeldvormingsgebaseerde schattingen te valideren tegenover conventionele hydraulische stromingsmetingen20,21,22. Omdat MicroCT intacte organen op schalen afbeeldt zonder fysieke sectionering, blijven de ruimtelijke relaties over de gehele nodule behouden. Met geschikte contrastmiddelen kunnen structuren op weefselniveau, zoals vaatbundels en infectiezones, worden onderscheiden; bovendien kan het doordringen voorbij de grens waar lichtverstrooiing conventionele optische benaderingen beperkt, wat bijzonder waardevol is voor ondoorzichtige en autofluorescerende nodules. Monsters kunnen ook opnieuw worden gescand, worden opgenomen in downstream correlatieve workflows na monstervoorbereiding voor licht- of elektronenmicroscopie, of worden gearchiveerd voor toekomstige analyse. Hoewel enkele studies MicroCT en synchrotron-gebaseerde röntgen-CT hebben gebruikt om wortelnodules van soja te onderzoeken, bestaat er geen gedetailleerd verslag dat het volledige proces beslaat, van de oogst en kleuring van de nodule tot de beeldvorming en reconstructie, in het bijzonder voor kleinere nodules zoals die van luzerne6,14. Röntgencontrast hangt af van de weefseldichtheid, en de meeste plantenweefsels hebben een lage dichtheid en zwakken röntgenstraling nauwelijks af. Zonder contrastmiddel kunnen nodules op een conventionele benchtop MicroCT niet van de achtergrond worden onderscheiden. Wij hebben fosfortungstinezuur (PTA) gebruikt, een aspecifieke kleurstof die bindt aan eiwitten en andere biomoleculen en waarvan is aangetoond dat het een hoog contrast in plantenweefsel produceert14.
Deze studie biedt een gedetailleerd stapsgewijs protocol voor microCT-beeldvorming van wortelknolletjes bij vlinderbloemigen met alfalfa als model, op een conventioneel laboratoriumsysteem dat een toegankelijker alternatief biedt voor röntgenmicroscopie (XRM) en synchrotron-gebaseerde platforms6,14. Deze workflow bevat specifieke instructies voor het oogsten van knolletjes van de wortel, fixatie, kleuring, contrastverbetering, montage, scannen, 3D-reconstructie en analyse (Figuur 1). Tussen deze stappen door geven we gedetailleerde parameters op om een stabiele montage, vochtretentie en een goed contrast te waarborgen. In essentie is deze microCT-pijplijn een reproduceerbare methode die non-destructieve, hoge-resolutie visualisatie mogelijk maakt van 3D-histologische kenmerken, waaronder de algemene weefselorganisatie, de bacteriële bezetting van plantencellen, duidelijke stikstoffixatiezones en vaatbundels van volledige alfalfa-wortelknolletjes in hun natuurlijke staat. Wij geloven dat dit protocol aanpasbaar is voor andere vlinderbloemige soorten, waardoor onderzoekers een praktische, intacte methode krijgen voor het visualiseren van de 3D-structuur en organisatie van dit zeer belangrijke wortelorgaan.
Protocol
1. Oogsten en fixeren van noduli
- Gebruik een scalpel (Zie Tabel met materialen) maak een rechte snede door de wortel aan beide zijden van de betreffende knol, zodat de knol aan de wortel bevestigd blijft (Figuur 2).
- Overbreng acht tot twaalf noduli naar een glazen flacon van 20 mL met 10 mL 70% (v/v) ethanol (Zie Tabel met materialen).
2. Kleuring van noduli
- Bereid 1% (w/v) PTA in 70% ethanol door 2 g PTA-poeder toe te voegen aan 200 mL 70% ethanol in een vierkante fles van 200 mL met brede opening (Zie Tabel met materialen). Schud tot het volledig is opgelost en bewaar vervolgens bij 4 °CMaak de kleurstof 1 dag voor gebruik.
- Verwijder de 70% ethanol die tijdens de fixatie is gebruikt en vervang deze door 10 mL van een 1% PTA-oplossing (Zie Tabel van materialen).
- Plaats het glazen vial op een orbital shaker bij kamertemperatuur op 80 rpm gedurende 4 weken. Vervang de kleuringsoplossing wekelijks door 10 mL verse 1% PTA (Zie Tabel met materialen, Figuur 2).
3. Montage van noduli
- Smelt paraffine op een warmteplaat bij 100 °C in een open glazen bekerglas van 100 mL (zie Tabel met Materialen).
- Selecteer 200 µL pipetpunten voor het insluiten van de monsters. Seal de punten aan de smalle zijde door ze ondiep (1–2 mm) in de gesmolten paraffine te dopen (zie Tabel met Materialen).
- Spoel het monster gedurende 5 min in 2 mL 70% ethanol in een microwell-schaaltje van 35 mm (zie Tabel met Materialen).
- Voeg 0,2 g laagsmeltende agarose toe aan een Erlenmeyer van 25 mL en meng dit met 20 mL gedemineraliseerd water om 1% (w/v) laagsmeltende agarose te verkrijgen. Verhit dit op een warmteplaat bij 50 °C en schud een paar keer tot het volledig is opgelost. Plaats de kolf vervolgens in een waterbad ingesteld op 40 °C (zie Tabel met Materialen).
- Voeg ongeveer 25 µL 1% laagsmeltende agarose toe aan de omgekeerde, gesealde pipetpunten en wacht 1 min tot het is afgekoeld (zie Tabel met Materialen).
- Pak één knolletje op en breng het met een fijne pincet over naar de pipetpunt om het te immobiliseren in de 1% laagsmeltende agarose. Gebruik een gel-laadpunt om het knolletje zo dicht mogelijk bij de met paraffine verzegelde zijde van de pipetpunt te plaatsen zonder het wortelknolletje te beschadigen (zie Tabel met Materialen).
- Plaats de punten met wortelknolletjes in een statief om de laagsmeltende agarose te laten stollen. Seal na stolling de open zijde van de pipetpunten met Parafilm om vocht vast te houden (zie Tabel met Materialen). Bewaar het monster in de koelkast bij 4 °C en scan de ingesloten monsters binnen een week.
4. MicroCT-beeldvorming
- Bevestig de pipetpunten ondersteboven op een passende monsterhouder om de kortst mogelijke afstand tot de röntgenbron te realiseren en een nauwkeurige centrering van het monster te garanderen (Zie Tabel met Materialen).
- Open de CT-software. Schroef het monster op de houder stevig vast op de rotatietafel van de microCT (Zie Tabel met Materialen, Figuur 3, Aanvullende Figuur 1).
- Schakel het camerabeeld en de röntgenbron in, en open vervolgens het scherm voor de continue röntgenweergave (Aanvullende Figuur 1).
- Stel de monsterhoogte verticaal bij zodat het gebied van interesse (region of interest) in het centrum van het continue röntgenscherm komt te staan. Noteer deze hoogte voor later gebruik in stap 4.10 (Aanvullende Figuur 1).
- Stel bij een binning van 512 × 512 de pixelgrootte in (zie Aanvullende Tabel 1) zodat het monster het grootste deel van het gezichtsveld van de continue röntgenweergave vult, met aan weerszijden wat lege ruimte (Aanvullende Figuur 1).
- Centreer het monster in het scherm van de continue röntgenweergave door om de 45° te roteren en telkens naar het centrum bij te stellen (Aanvullende Figuur 1).
- Wijzig de binning naar 2048 × 2048 (zie Aanvullende Tabel 1, Aanvullende Figuur 1).
- Kies voor geen filter en stel in het menu Scanning Modes de spanning in op 50 kV en de stroom op 40 µA (zie Aanvullende Tabel 1, Aanvullende Figuur 1).
- Voer een flat-field correctie uit door het monster naar 68 mm te verplaatsen, zodat het zich buiten het gezichtsveld van het continue röntgenscherm bevindt. Schakel Flat Field Correction uit en stel de Exposure Time zo in dat de gemiddelde röntgentransmissie 55% bedraagt. Schakel Flat Field Correction vervolgens in (zie Aanvullende Tabel 1, Aanvullende Figuur 1).
- Verplaats het monster terug naar de hoogte die in stap 4.4 is bepaald (Aanvullende Figuur 1).
- Stel in Scanning Options de bestandsnaam en de maplocatie in (Aanvullende Figuur 1).
- Stel de rotatiestap in op 0,200°. Zet Frame Average op 3 en Random Movement op 30. Kies voor een 360° scan (zie Aanvullende Tabel 1, Aanvullende Figuur 1).
- Pas indien gewenst Partial width aan om overmatige lege ruimte uit te sluiten en de datagrootte te verminderen (Aanvullende Figuur 1).
- Klik op Scan om te starten met scannen (Aanvullende Figuur 1).
5. Beeldreconstructie
- Open de software voor beeldreconstructie en laad alle 2D-projecties van de scan (Zie Tabel met materialen, Fig. 4).
- Klik op Preview om de reconstructieresultaten te visualiseren op de locatie van de groene lijn (Aanvullende figuur 2).
- Pas het histogram aan in het tabblad Output. Snijd het vlakke gedeelte aan de rechterkant af en houd de waarde aan de linkerkant op 0 of iets minder dan 0 (Aanvullende figuur 2).
- Klik in het tabblad Start op Fine Tuning voor de post-uitlijning. Begin met de Parameter-stap op één en het Number (aantal) pogingen op vijf. Klik op Start en OK. Wanneer de resultaten verschijnen in het tabblad Output, klikt u op het prv-venster en bladert u met de pijlen door de resultaten om de beste uitlijning te kiezen. Laat deze op het beste beeld staan (Aanvullende figuur 2).
- Activeer ROI in het tabblad Output door het vakje naast Use ROI aan te vinken. Kies circle (cirkel) als ROI-vorm. Pas de ROI-grootte aan aan de grootte van het monster over het datavolume door terug te keren naar het tabblad Start en de groene lijn te verplaatsen om verschillende locaties voor te bekijken. Laat wat lege ruimte rond het monster over (Aanvullende figuur 2).
- Klik terug naar het tabblad Start. Verplaats de rode lijnen aan de boven- en onderkant om de gebieden af te snijden die niet nodig zijn in de reconstructiegegevens. Controleer of er belangrijke gegevens zijn uitgesloten door de groene lijn dicht bij de rode lijnen te plaatsen en de reconstructies in het tabblad Output voor te bekijken (Aanvullende figuur 2).
- Sla de reconstructie in het tabblad Output op als TIFF (16-bit) afbeeldingen op de gewenste locatie (Aanvullende figuur 2).
- Ga terug naar het tabblad Start en klik op Start (Aanvullende figuur 2).
6. 3D-visualisatie
- Open de Dragonfly-software (zie Tabel met materialen).
OPMERKING: Raadpleeg voor aanvullende informatie over Dragonfly en de mogelijkheden hiervan https://dragonfly.comet.tech/ - Importeer de gereconstrueerde TIFF-afbeeldingen.
- Selecteer alle afbeeldingen en bevestig dat de afstand tussen de afbeeldingen gelijk is aan de Scaled Image Pixel Size in het scan-tekstbestand (Aanvullende figuur 3).
- Pas de window leveling aan om een 3D-weergave met een goed contrast te verkrijgen (Aanvullende figuur 3).
- Scroll door de verschillende 2D-doorsnedevlakken (XY, transversaal; XZ, coronaal; YZ, sagittaal) (Aanvullende figuur 3).
- Klik met de rechtermuisknop op de afbeelding en exporteer een screenshot van de weergave om indien nodig doorsnedevlakken op te slaan (Figuur 4).
Resultaten
We hebben telkens twee wortelknolletjes geoogst van drie M. sativa-planten. Twee knolletjes werden gebruikt voor vergelijkingen van de kleuringsduur, en vier werden gefotografeerd na de volledige kleuring van 28 dagen met 1% PTA in 70% ethanol voor contrastverbetering. Door 1% laagsmeltende agarose als inbeddingsmedium in pipetpunten te gebruiken, creëerden we een inbeddingsomgeving met een lage röntgendichtheid rondom het monster. De kleuringsoplossing verhoogde met succes het contrast van het plantenweefsel (Figuur 5A,B, Aanvullende Figuur 4). Het signaal van het monster kon eenvoudig worden gescheiden van de achtergrond en de pipetpunt aan de hand van het datahistogram, wat een ongehinderde 3D-visualisatie van de externe en interne structuur van het volledige wortelknolletje mogelijk maakte (Figuur 5A,B).
De buitenste epidermis is zichtbaar, maar vertoont minder contrast dan de overige weefsels (Figuur 5C–E). Daarentegen zijn de vaatbundels duidelijk en goed verbonden van de onderkant tot de bovenkant van het monster (Figuur 5A,B). In dwarsdoorsneden kunnen we het aantal en de splitsing van deze bundels duidelijk zien (Figuur 5C). Bovendien vertoont het binnenste weefsel een goed contrast, waardoor de cortex en plantenvacuolen kunnen worden geïdentificeerd (Figuur 5C–E). Het hoge contrast maakt het bovendien eenvoudig om geïnfecteerde en niet-geïnfecteerde cellen te herkennen (Figuur 5C–E). De coronale en sagittale doorsneden onthullen de distributie van de meristematische zone, de infectiezone en de differentiatiezone (Figuur 5D). Aanvullende Video 1 toont een 360°-zicht van een in 3D gereconstrueerd wortelknobbeltje.
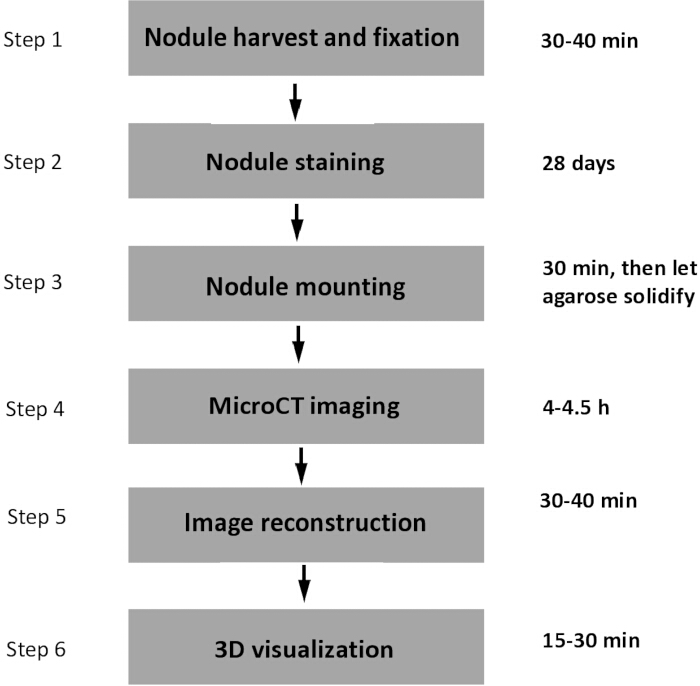
Figuur 1: Workflow van het protocol. Overzicht van de workflow voor het gebruik van microCT om wortelknolletjes van vlinderbloemigen te beelden en de benodigde tijd voor elke stap. Klik hier om een grotere versie van deze figuur te bekijken.
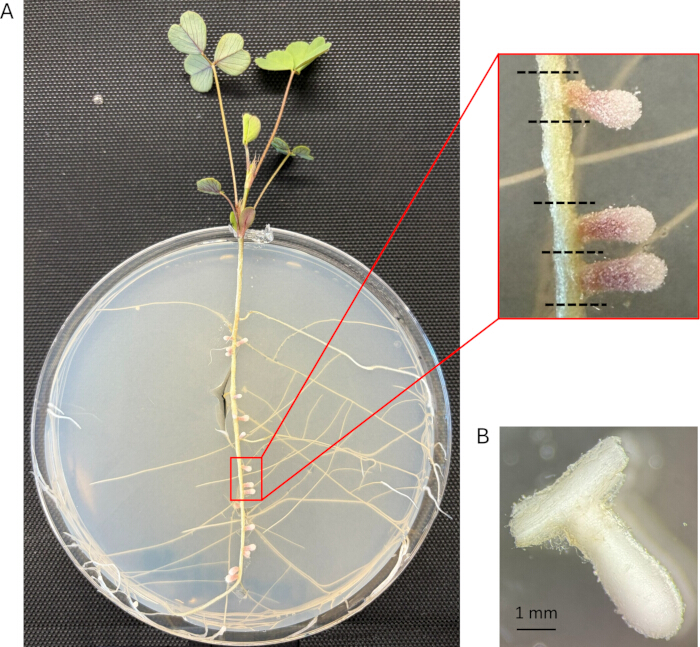
Figuur 2: M. sativa-wortelknolletjes voor dit protocol. (A) M. sativa-plant 28 dagen na inoculatie met S. meliloti-bacteriën (28 dpi). De zwarte stippellijnen geven de voorgestelde snijlijnen aan voor het uitsnijden van de afgebeelde knolletjes. Per plant werden twee knolletjes uitgesneden bij drie planten, en er werden vier monsters gescand. (B) M. sativa-knolletje na 28 dpi na 4 weken PTA-kleuring. Klik hier om een grotere versie van deze figuur te bekijken.
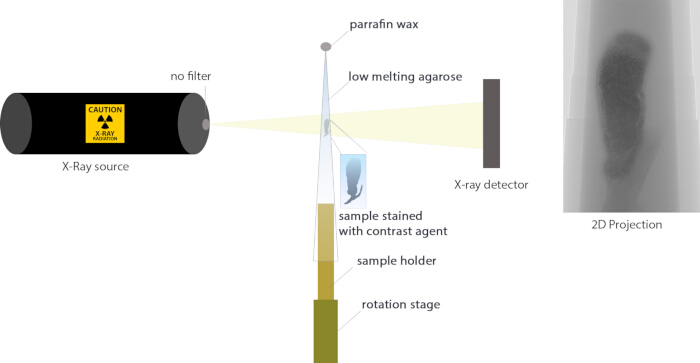
Figuur 3: Overzicht van de microCT-monsteropstelling. De wortelknol, gekleurd met een contrastmiddel, is gestabiliseerd in laagsmeltende agarose binnen een micropipetpunt. De micropipetpunt is aan één uiteinde afgedicht met paraffine-was en bevestigd op de rotatietafel in de microCT-machine. De röntgenbron (zonder filter) bevindt zich aan één zijde van de machine, en de stralen passeren het monster om de röntgendetector aan de andere zijde te bereiken. De scan resulteert in een 2D-projectie op basis van de weefseldichtheid. Klik hier om een grotere versie van deze figuur te bekijken.
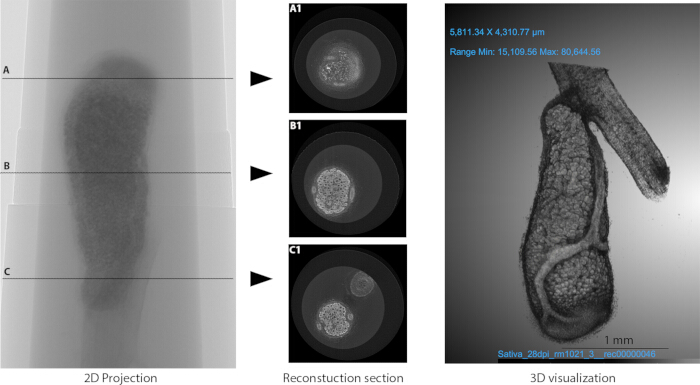
Figuur 4: Voorbeeld van beeldreconstructie en 3D-visualisatie. (Links) 2D-projectie. (Midden) Reconstructiesectie. A1, B1 en C1 tonen gereconstrueerde transversale doorsneden op locaties A, B en C van de microCT 2D-projectie. (Rechts) Een 3D-visualisatie van de wortelknol geproduceerd uit gereconstrueerde beelden. Klik hier om een grotere versie van deze figuur te bekijken.
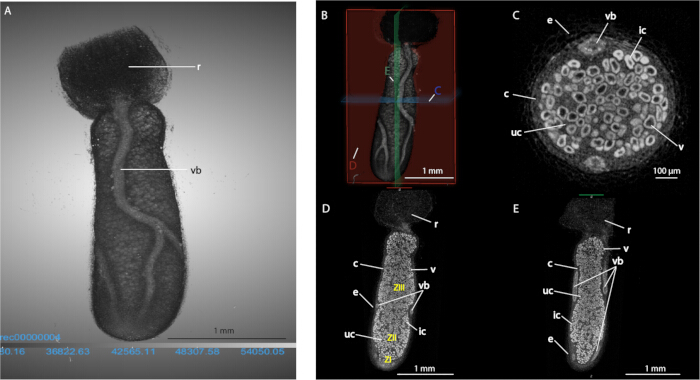
Figuur 5: Geannoteerde representatieve afbeeldingen. (A) Geannoteerde 3D-visualisatie van een M. sativa wortelknolletje. (B) Rode, blauwe en groene contouren op een 3D-afbeelding die respectievelijk het transversale (C), coronale (D) en sagittale (E) vlak tonen. Geannoteerde transversale (C), coronale (D) en sagittale (E) doorsneden van een M. sativa wortelknolletje. Afkortingen: c – cortex; e – epidermis; ic – geïnfecteerde cel; r – wortel; uc – niet-geïnfecteerde cel; v – vacuole; vb – vaatbundel; ZI – Zone I (meristematisch); ZII – Zone II (infectie); ZIII – Zone III (differentiatie). Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende figuur 1. Software-screenshots voor microCT-beeldvorming. (A1) Deur van de objecttafel openen en sluiten. (A2) Cameraweergave inschakelen. (A3) Röntgenbron inschakelen. (A4) Continue röntgenweergave inschakelen. (A5) Monsterhoogte aanpassen. (A6) Pixelgrootte aanpassen. (A7) Monster roteren. (A8) Binning wijzigen. (A9) Filter wijzigen. (A10) Opties voor toegang tot scanmodi. (A11) Spanning en stroom van de röntgenbron instellen. (A12) Dubbelklikken om flat-field-correctie uit te schakelen. (A13) Scanopties. (B1) Flat-field-correctie uitgeschakeld. (B2) Opties voor toegang tot scanmodi. (B3) Gemiddelde röntgentransmissie. (B4) Belichtingstijd aanpassen. (B5) Flat-fields bijwerken. (C1) Bestandsnaam opgeven en opslaglocatie voor de gegevens kiezen. (C2) Rotatiestap, frame-averaging, random movement en 360 graden scanning instellen. (C3) Partiële breedte aanpassen. (C4) Scan starten.Klik hier om dit bestand te downloaden.
Aanvullende figuur 2. Software-screenshots voor beeldreconstructie. (A1) Kies waar het monster moet worden voorvertoning. (A2) Voorvertoning monster. (A3) Fijnafstemming van parameters. (A4) Stel het aantal pogingen en de parameterstap in voor de uitlijning achteraf. (A5-6) Boven- en onderkant van het reconstructiegebied. (A7) Start reconstructie. (B1) Contrast aanpassen. (B2) Resultaten van de uitlijning achteraf bekijken en doorbladeren. (B3) Cirkelvormige ROI maken. (B4) Kies het bestandsformaat en de opslaglocatie van de gegevens.Klik hier om dit bestand te downloaden.
Aanvullende figuur 3. Software-screenshots voor 3D-visualisatie. (A) Informatie over de beeldspatiëring. (B) Selectie-, rotatie- en zoomhulpmiddelen (boven). Window leveling voor contrast (onder). (C) Weergave van de schaalbalk (boven). Wijzigen van de achtergrondkleur (onder). Klik hier om dit bestand te downloaden.
Aanvullende Figuur 4. MicroCT-reconstructie na PTA-kleuring gedurende 14, 17 en 28 dagen. (A) Gereconstrueerde M. sativa-doorsnede na 14 d PTA-kleuring vertoont ruis in de buitenlaag (n = 1). (B) Gereconstrueerde M. sativa-doorsnede na 17 d PTA-kleuring vertoont een hoger contrast in de buitenlaag, maar minder helderheid in het binnenste gedeelte vergeleken met (A) (n = 1). (C) Gereconstrueerde M. sativa-doorsnede na 28 d PTA-kleuring vertoont een hoger contrast in zowel de buiten- als de binnenlaag vergeleken met (A) en (B) (n = 4).Klik hier om dit bestand te downloaden.
Aanvullende tabel 1: Parameters voor microCT-beeldvorming.Klik hier om dit bestand te downloaden.
Aanvullende video 1: 3D-videobeelden van de nodulus.Klik hier om dit bestand te downloaden.
Discussie
Hieronder volgen enkele aanbevelingen voor monsterbereiding en kleuring. Tijdens de monsterbereiding voor microCT-imaging is een zorgvuldige excisie van de noduli essentieel om de structurele integriteit te behouden. Wij raden aan om aan weerszijden van het aanhechtingspunt van de nodule een klein segment van de wortel te behouden om de ruimtelijke context te bewaren en weefselschade te minimaliseren. Het gebruik van een contrastmiddel is cruciaal om de röntgenabsorptie te verhogen en interne anatomische kenmerken te visualiseren14. Een eerdere studie met PTA-kleuring heeft aangetoond dat een minimale kleuringsperiode van 14 dagen nodig is om voldoende contrast te bereiken bij verschillende plantensoorten en weefseltypes, zonder bewijs van overkleuring14. In die studie werden door Bradyrhizobium geïnduceerde wortelnoduli van soja (gefixeerd op 14 dpi) gedurende 35 dagen gekleurd14. Met dit bereik (14–35 dagen) als referentie hebben we voorlopige kleuringstests uitgevoerd op onze eigen nodulemonsters op verschillende tijdstippen (14, 17 en 28 dagen) en het resulterende beeldcontrast vergeleken. Voor dit protocol is een kleuringsperiode van 28 dagen gekozen, aangezien dit een beter contrast, duidelijkere celgrenzen en een gelijkmatigere kleuring opleverde in vergelijking met kortere tijdstippen (Supplementary Figure 4). We merken op dat de reconstructies van 14 en 17 dagen afkomstig zijn van een enkele nodule in plaats van een systematische replicatiestudie, terwijl de 28-daagse conditie alle vier de gescande noduli omvat; de kleuringsduur moet worden aangepast op basis van de resolutie die voor de studie vereist is. Een kleuringsperiode van 28 dagen is bovendien geen kort tijdsbestek. Zoals gesuggereerd in eerdere studies, kan magnetron-ondersteunde kleuring helpen om de penetratie van PTA te versnellen en daarmee de vereiste kleuringsduur te verkorten14. Op jodium gebaseerde middelen, zoals Lugol-oplossing, worden ook gebruikt om het contrast in planteweefsel te verhogen23,24. We hebben gekozen voor PTA op basis van de aangetoonde prestaties in noduleweefsel en hebben geen verschillende kleuringsmiddelen vergeleken, aangezien het hoofddoel van deze studie was om één reproduceerbaar protocol vast te stellen14. Toekomstige studies dienen andere kleurstoffen te testen bij verschillende plantensoorten en weefseltypes.
Een correcte inbedding is even belangrijk. Het monster moet volledig bedekt blijven met laagsmeltende agarose om uitdroging te voorkomen en de natuurlijke morfologie te behouden. Na het inbedden moeten de monsters een nacht bij 4 °C worden bewaard om de stolling van de agarose te waarborgen, zodat de stabiliteit tijdens het scannen behouden blijft. Het gemonteerde monster moet stevig aan de scantafel worden bevestigd om drift of vibratie-artefacten tijdens de gegevensverwerving te voorkomen.
MicroCT maakt niet-destructieve, driedimensionale visualisatie van volledig knolweefsel mogelijk met een resolutie die grover is dan die van zowel licht- als elektronenmicroscopie. Zowel XRM als synchrotron-gebaseerde röntgen-CT leveren over het algemeen beelden van hogere kwaliteit en resolutie op dan conventionele microCT. Synchrotron-gebaseerde röntgen-CT maakt het ook mogelijk om verse, ongekleurde monsters direct te scannen, aangezien een hoge fotonenflux en bundelcoherentie snelle acquisitie en voldoende contrast mogelijk maken zonder contrastversterkende middelen6. Directe vergelijking met Duncan et al. (2022)14 en Nakhforoosh et al. (2024)6 wordt beperkt door verschillen in studieontwerp: soort (soja vs Medicago sativa), type knol (determinaat vs indeterminaat) en beeldgevingsmodaliteit (XRM en synchrotron-gebaseerde röntgen-CT vs conventionele microCT). Desondanks is de nominale pixelgrootte van onze knolreconstructies ongeveer 1,75 µm, fijner dan de knolscan in Duncan et al. (2022)14 (2,2 µm, Figuur 4A), hoewel hun reconstructies nog steeds een grotere helderheid vertonen dan de onze. Dit weerspiegelt waarschijnlijk dat de effectieve resolutie afhangt van meer dan alleen de nominale pixelgrootte; de optische vergroting van de objectieflenzen van de XRM, de detectorgevoeligheid, bronstabiliteit, camerakwaliteit en reconstructiemethoden dragen hier allemaal aan bij. Hoewel grote, laag-densiteitskenmerken zoals vacuolen gemakkelijk te onderscheiden zijn, zoals hier getoond, is de bezetting van individuele cellen door bacterioïden en kleinere of minder dichte organellen dat niet, en dynamische biologische processen kunnen niet in real-time worden vastgelegd. PTA en jodiumgebaseerde contrastmiddelen zijn aspecifiek en kunnen geen moleculaire identiteit rapporteren. Subcellulaire vraagstukken zullen nog steeds fluorescentie- of elektronenmicroscopie vereisen. Deze beeldgevingsbenaderingen zijn complementair, waarbij microCT zeer geschikt is voor de morfologie van het hele orgaan en de 3D-weefselarchitectuur, waardoor er context wordt geboden voor licht- en elektronenmicroscopie, die fijnere structurele en moleculaire details behandelen.
We hebben deze workflow succesvol gereproduceerd met wortelknolletjes op vergelijkbare tijdstippen en ontwikkelingsstadia van M. sativa geïnoculeerd met andere S. meliloti-stammen, en M. truncatula en Trigonella foenum-graecum geïnoculeerd met verschillende S. meliloti-stammen (ongepubliceerde gegevens). We hebben geen wortelknolletjes in verschillende ontwikkelingsstadia getest, aangezien ons doel was om een reproduceerbaar protocol te karakteriseren en te leveren voor volwassen, stikstoffixerende wortelknolletjes. Desondanks zou de workflow toepasbaar moeten zijn op wortelknolletjes in verschillende ontwikkelingsstadia, aangezien de meest relevante beperking de grootte van het wortelknolletje is. De gescande wortelknolletjes waren ongeveer 2,5 mm lang (Aanvullende Tabel 1). Voor de microCT die in deze studie is gebruikt, raden we een minimale lengte van 1 mm aan. De grootte die kan worden afgebeeld, is afhankelijk van de gebruikte machine, aangezien de vergrotingen kunnen variëren.
Recent bewijs suggereert dat de bezettingsgraad binnen de wortelknol een belangrijke parameter is die direct correleert met de efficiëntie van stikstoffixatie. Wortelknollen met een groter aandeel geïnfecteerde cellen blijken stikstof beter te fixeren dan knollen waarin minder cellen door bacteriën zijn bezet25. Daarnaast hangt de gezondheid van de wortelknol af van de uitgebreidheid van de vasculatuur; een verstoorde of beperkte vasculatuur duidt op defecte wortelknollen en een verminderde gezondheid van de plant26. Gezien de mogelijkheid om de bezettingsgraad en de vasculaire architectuur te visualiseren, vult microCT een belangrijk gat in het vakgebied van stikstoffixatie. Deze workflow maakt niet-destructieve visualisatie van de interne en externe structuren van wortelknollen routinematig toegankelijk, waarbij deze structuren directe determinanten zijn van de fixatie-efficiëntie die de symbiotische stikstofvoorziening aan gewassen aandrijft.
Openbaarmakingen
De auteurs hebben niets te vermelden.
Dankbetuigingen
Wij willen Stephanie Sage bedanken voor haar hulp bij de plantpreparatie. Xia Zhao hielp bij het inbedden van de monsters. Wij zijn Madi Mitchell dankbaar voor de initiële projectbespreking. Wij willen Tom Kleist en Kexi Yi bedanken voor hun advies over de interpretatie van de gegevens. Ook danken wij Keith Duncan (Donald Danforth Plant Science Center) voor zijn advies over het protocol. Dit project wordt gefinancierd door het Stowers Institute for Medical Research.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 20 mL Glazen flacon | Sigma-Aldrich | Z190527 | Gebruikt om wortelknobbeltjes vast te houden voor fixatie en kleuring. |
| 200 µL Pipetpunten | Fisherbrand | 02-717-144 | Gebruikt om wortelknobbeltjes vast te houden voor beeldvorming. |
| 35 mm Microwell-schaal | Fisher Scientific | 507532924 | Gebruikt om wortelknobbeltjes te wassen na kleuring. |
| Dragonfly Software | Comet Technologies Canada Inc. | V2022.2 | Gebruikt om 2D-reconstructies in een 3D-weergave te visualiseren en te manipuleren. |
| Ethanol | Decon Labs | V1001 | Gebruikt om wortelknobbeltjes te fixeren en te wassen. |
| Fijne pincet | Dumont | AA-Inox-E | Gebruikt om wortelknobbeltjes in de pipetpunt te positioneren. |
| Gel load tip | Corning (Costar) | 4853 | Gebruikt om het wortelknobbeltje binnen de agarose in de pipetpunt te manipuleren. |
| Warmteplaat | Mirak | SP72725 | Gebruikt om paraffine te smelten en lowMelt agarose op te lossen. |
| LowMelt agarose | GeneMate | 490001-602 | Gebruikt voor het inbedden van wortelknobbeltjes om de oriëntatie en vochtigheid te behouden. |
| MicroCT | Bruker | Bruker SkyScan 1272 | Gebruikt voor het scannen van het wortelknobbeltje. |
| NRecon Software | Bruker | V2.2.0.6 | Gebruikt voor de reconstructie van 2D-projecties. |
| Orbitale schudder | VWR | 77591-858 | Gebruikt voor het schudden van het wortelknobbeltje om de penetratie van de kleuring te versnellen. |
| Paraffine | McCormick Scientific | 39503002 | Gebruikt om het smalle uiteinde van de pipetpunt af te dichten. |
| Parafilm | Alkali Scientific | PM996 | Gebruikt om pipetpunten af te dichten om te voorkomen dat het monster uitdroogt. |
| Fosforwolfraamzuur | Electron Microscopy Science (EMS) | 19500 | Gebruikt voor de kleuring van wortelknobbeltjes. |
| Monsterhouder - L 3.4 cm D 0.63 mm | Bruker | Set from Bruker with machine | Gebruikt om de pipetpunt en het monster tijdens de beeldvorming vast te houden. |
| Scalpel | Fisher Scientific | S07890 | Gebruikt om wortelknobbeltjes te oogsten. |
| Skyscan software | Bruker | v1.5.1.0 | Gebruikt voor het aansturen van de MicroCT. |
| Waterbad | Boekel Grant | 640013001 | Gebruikt om agarose vloeibaar te houden tijdens het inbedden van wortelknobbeltjes. |
Referenties
- Oldroyd GED, Murray JD, Poole PS, Downie JA. The rules of engagement in the legume-rhizobial symbiosis. Annu Rev Genet. 2011;45:119-44.
- Gibson KE, Kobayashi H, Walker GC. Molecular determinants of a symbiotic chronic infection. Annu Rev Genet. 2008;42:413-41.
- Porter SS, et al. Host-imposed control mechanisms in legume-rhizobia symbiosis. Nat Microbiol. 2024;9:1929-39.
- Guerra-García FJ, Sankari S. NCR peptides in plant-bacterial symbiosis: applications and importance. Trends Microbiol. 2025;33(2):147-50.
- Rae AE, Rolland V, White RG, Mathesius U. New methods for confocal imaging of infection threads in crop and model legumes. Plant Methods. 2021;17:24.
- Nakhforoosh A, et al. Visualization and quantitative evaluation of functional structures of soybean root nodules via synchrotron X-ray imaging. Plant Phenomics. 2024;6.
- Nierenberger M, Rémond Y, Ahzi S, Choquet P. Assessing the three-dimensional collagen network in soft tissues using contrast agents and high resolution micro-CT: Application to porcine iliac veins. C R Biol. 2015;338(7):425-33.
- Livingston D, Tuong T, Nogueira M, Sinclair T. Three-dimensional reconstruction of soybean nodules provides an update on vascular structure. Am J Bot. 2019;106(3):507-13.
- Warner CA, et al. An optical clearing technique for plant tissues, allowing deep imaging and compatible with fluorescence microscopy. Plant Physiol. 2014;166(4):1684-7.
- Indore NS, Karunakaran C, Jayas DS. Synchrotron tomography applications in agriculture and food sciences research: a review. Plant Methods. 2022;18:101.
- Novák K. Determination of symbiotic nodule occupancy in the model Vicia tetrasperma using a fluorescence scanner. Ann Bot. 2011;107(4):709-15.
- Martin L, et al. Cancer cachexia in the age of obesity: Skeletal muscle depletion is a powerful prognostic factor, independent of body mass index. J Clin Oncol. 2013;31(12):1539-47.
- Liguori C, et al. Emerging clinical applications of computed tomography. Med Devices (Auckl). 2015;8:265-78.
- Duncan KE, et al. X-ray microscopy enables multiscale high-resolution 3D imaging of plant cells, tissues, and organs. Plant Physiol. 2022;188(2):831-45.
- Wang J, et al. A deep learning-based micro-CT image analysis pipeline for nondestructive quantification of the maize kernel internal structure. Plant Phenomics. 2025;7(1).
- Brackin R, Atkinson BS, Sturrock CJ, Rasmussen A. Roots-eye view: Using microdialysis and microCT to non-destructively map root nutrient depletion and accumulation zones. Plant Cell Environ. 2017;40(12):3135-42.
- Brodersen CR, Roddy AB. New frontiers in the three-dimensional visualization of plant structure and function. Am J Bot. 2016;103(2):184-8.
- Schoborg TA, et al. Micro-computed tomography as a platform for exploring Drosophila development. Development. 2019;146(23).
- Wang M, et al. Nanoplastics causes extensive congenital malformations during embryonic development by passively targeting neural crest cells. Environ Int. 2023;173.
- Brodersen CR, et al. The dynamics of embolism repair in xylem: In vivo visualizations using high-resolution computed tomography. Plant Physiol. 2010;154(3):1088-95.
- Brodersen CR, et al. In vivo visualizations of drought-induced embolism spread in Vitis vinifera. Plant Physiol. 2013;161(4):1820-9.
- Nolf M, et al. Visualization of xylem embolism by X-ray microtomography: a direct test against hydraulic measurements. New Phytol. 2017;214(2):890-8.
- Karahara I, Yamauchi D, Uesugi K, Mineyuki Y. Three-dimensional visualization of plant tissues and organs by X-ray micro-computed tomography. Microscopy (Oxf). 2023;72(4):310-25.
- Staedler YM, Masson D, Schönenberger J. Plant tissues in 3D via X-ray tomography: simple contrasting methods allow high resolution imaging. PLoS One. 2013;8(9).
- Sánchez-Cañizares C, et al. Developmental fates and N2-fixing efficiency of terminally-differentiated versus undifferentiated bacteroids from legume nodules. Plant Physiol. 2026;200(3).
- Pepper AN, Morse AP, Guinel FC. Abnormal root and nodule vasculature in R50 (sym16), a pea nodulation mutant which accumulates cytokinins. Ann Bot. 2007;99(4):765-76.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar