Dit protocol biedt een op beelden gebaseerd protocol voor live-cell imaging om de cytotoxiciteit gemedieerd door tumor-infiltrerende lymfocyten (TIL) tegen tumor-organoïden afgeleid van patiënten te kwantificeren, waardoor real-time kinetische analyse van apoptose mogelijk wordt gemaakt voor functionele immuunprofilering en evaluatie van immunomodulerende therapieën.
Methodenartikel
Een real-time beeldvormende co-culture assay om de apoptotische doding van patiëntafgeleide tumororganoïden door tumorinfiltrerende lymfocyten te kwantificeren
In dit artikel
Samenvatting
Samenvatting
Het begrijpen van het functionele vermogen van tumor-infiltrerende lymfocyten (TIL's) om autologe tumorcellen te herkennen en te elimineren, is essentieel voor het bevorderen van gepersonaliseerde immunotherapie. Het doel van deze methode is om een op beelden gebaseerd protocol voor live-cell imaging te bieden dat TIL-gemedieerde, caspase-3-afhankelijke apoptotische doding van patiënt-afgeleide tumororganoïden (PDTO's) in real-time meet. Deze methode integreert gevestigde procedures voor de isolatie en expansie van PDTO's en TIL's met een gestandaardiseerd driedimensionaal co-cultuursysteem en geautomatiseerde fluorescentie-gebaseerde apoptosedetectie.
Tumororganoïden worden geplaatst in beeldvormingscompatibele 96-wells platen en gelabeld met een rode tumormarker, terwijl geëxpandeerde TILs worden toegevoegd in gedefinieerde effector-target-ratio's in aanwezigheid van een caspase-3-geactiveerd groen fluorescent substraat. Co-culturen worden elke 4 h afgebeeld met een live-cell analysesysteem om fasecontrast- en dubbele fluorescentiekanalen vast te leggen. Kwantitatieve beeldanalyse identificeert rood-positieve tumorstructuren en berekent het aandeel rood/groen dubbel-positieve apoptotische tumorobjecten in de loop van de tijd. Er worden passende technische en biologische replica's opgenomen, samen met baseline, spontane apoptose, negatieve en positieve killing-controles om de striktheid van de assay te waarborgen.
Door de tumorheterogeniteit binnen de driedimensionale architectuur van de PDTO's te behouden en tegelijkertijd longitudinale kwantificering mogelijk te maken, biedt dit protocol een fysiologisch relevant systeem voor het functioneel profileren van patiëntspecifieke tumor-TIL-interacties en het onderzoeken van immunomodulerende middelen die de anti-tumorimmuniteit versterken.
Inleiding
Kankerimmunotherapie is getransformeerd door de ontwikkeling van immuuncheckpointremmers (ICIs) die zich richten op de paden van het programmed cell death protein 1/programmed death-ligand 1 (PD-1/PD-L1) en het cytotoxisch T-lymfocyt-geassocieerde eiwit 4 (CTLA-4), die endogene T-cel-gemedieerde antitumorresponsen in meerdere typen solide tumoren herstellen1,2,3. Ondanks duurzame responsen bij een subset van patiënten bereikt de meerderheid geen betekenisvol klinisch voordeel, en gevalideerde predictieve biomarkers om responders prospectief te identificeren blijven een onvervulde behoefte. Functionele assays die direct de T-cel-gemedieerde tumorceldoding meten, zijn daarom cruciale instrumenten voor biomarkerontdekking en preklinische evaluatie van therapeutische combinaties die zijn ontworpen om cytotoxische immuunresponsen te versterken.
Conventionele cytotoxiciteitstests, waaronder chromium-51-vrijgave, lactaatdehydrogenase (LDH)-kwantificering en op luminescentie gebaseerde ATP-viabiliteitstests zoals CellTiter-Glo, worden op grote schaal gebruikt om immuun-gemedieerde celdood te kwantificeren, maar genereren bulkmetingen op één enkel tijdstip die geen ruimtelijke en temporele resolutie bieden4,5,6. Op dezelfde manier kwantificeren endpoint-flowcytometrie-gebaseerde killing-assays de celdood op een vast tijdstip en zijn ze ongeschikt voor driedimensionale kweekformaten. Bovendien bootsen tweedimensionale tumorcellijnen, die veelvuldig in deze assays worden gebruikt, de tumor-intrinsieke heterogeniteit van primaire patiënttumoren niet volledig na.
Op patiënten gebaseerde tumor-organoïden (PDTO's) zijn ontstaan als een klinisch relevant ex vivo platform dat de genomische alteraties, cellulaire heterogeniteit en drug-response-fenotypen van de oorspronkelijke tumor getrouwer behoudt dan conventionele cellijnmodellen7,8,9,10,11,12. Recente studies hebben aangetoond dat PDTO's kunnen worden gecocultiveerd met autologe immuuncellen om antitumor-immuunresponsen ex vivo te modelleren; de meeste gepubliceerde benaderingen vertrouwen echter op endpoint-viabiliteitsmetingen of arbeidsintensieve confocale imaging-analyses, wat de experimentele doorvoer beperkt en dynamische monitoring van de killing-respons verhindert13,14,15,16.
Hier beschrijven we een real-time, op beelden gebaseerde co-culture assay voor de kwantitatieve, uit beelden afgeleide uitlezing van T-cel-gemedieerde cytotoxiciteit tegen fluorescentie-gelabelde PDTO's. De methode maakt gebruik van time-lapse fluorescentiemicroscopie in combinatie met een caspase-3-geactiveerd fluorescent substraat om kinetische apoptosecurves te genereren met een resolutie op individuele organoïde-niveau over een observatieperiode van 12–36 h. Vergeleken met conventionele cytotoxiciteitsassays biedt dit platform verschillende technische voordelen: het behoudt de driedimensionale tumorarchitectuur gedurende de gehele assay, maakt de temporele dynamiek van apoptose-inductie inzichtelijk, maakt gedefinieerde effector-doelwit-ratio's mogelijk en heeft potentiële toekomstige toepassingen voor drugscreeningformaten met een medium-throughput, inclusief immuuncheckpointremmers en targeted agents die alleen of in combinatie worden getest. Dit protocol is bedoeld voor onderzoekers die werken in de immuno-oncologie, functionele precisiegeneeskunde en T-celbiologie, en kan worden geïmplementeerd in laboratoria die zijn uitgerust met een standaard weefselkweekinfrastructuur en een live-cell fluorescentie-imagingsysteem.
De isolatie en kweek van patiënt-afgeleide tumororganoïden (PDTO's) en bijbehorende tumor-infiltrerende lymfocyten (TIL's) uit menselijke tumorspecimens zijn goed gevestigde en breed gepubliceerde methodologieën. Robuuste protocollen die mechanische en enzymatische tumordissociatie, 3D-inbedding in basaalmembraanmatrix, langdurige organoïdenexpansie en parallelle isolatie en ex vivo expansie van TIL's beschrijven, zijn uitgebreid gevalideerd voor meerdere tumortypen. Deze methoden behouden betrouwbaar de heterogeniteit, architectuur en immuunspecificiteit van tumorcellen en zijn aangepast in co-culturesystemen om tumor-immuuninteracties te evalueren. Daarom werden in deze studie de isolatie en expansie van organoïden en TIL's uitgevoerd volgens eerder gepubliceerde en gevalideerde protocollen, zonder wezenlijke wijzigingen tenzij anders vermeld.
Protocol
We hebben alle procedures met menselijk tumorgeweefsel en tumorinfiltrerende lymfocyten (TILs) uitgevoerd in overeenstemming met de goedkeuring van de Institutional Review Board (IRB#1305013903) en de institutionele biosafety-regelgeving, waarbij voorafgaand aan de weefselverwerving schriftelijke geïnformeerde toestemming is verkregen. Het goedkeurende orgaan was de Institutional Review Board van Weill Cornell Medicine (vermeld als de Institutional Review Board (IRB), Weill Cornell Medicine, New York, NY), onder protocol #1305013903. De monsters die onder dit protocol vallen, omvatten overgebleven tumorgeweefsel verkregen uit standaardoperaties of onderzoeksprocedures na routinematige pathologische beoordeling; bestaand archiefmateriaal van bevroren of in formaline gefixeerd en in paraffine ingebed (FFPE) weefsel van Weill Cornell Medical College of andere instellingen; bloed, waaruit perifere mononucleaire bloedcellen (PBMCs), serum en plasma worden geïsoleerd en opgeslagen; buccale swabs, speeksel, urine of goedaardig weefsel dat in sommige gevallen als controle wordt gebruikt; en, voor deelnemers die zijn opgenomen in het Rapid Autopsy Program, weefsel verzameld bij autopsie uitgevoerd binnen 6 u (tot 24 u) na het overlijden. De in deze studie gebruikte TILs zijn uitgebreid vanuit de hierboven beschreven tumorweefselmonsters. Persoonlijke identificatiegegevens zijn verwijderd uit alle biospecimens, die alleen via een uniek patiëntidentificatienummer gekoppeld waren aan de identiteit van de deelnemer, in overeenstemming met HIPAA en institutionele normen; gegevens werden pas bij het opstellen van het rapport opnieuw geïdentificeerd. Alle experimenten werden uitgevoerd onder Biosafety Level 2 (BSL-2) condities in een gecertificeerde Klasse II biologische veiligheidskabinet. Biohazardous materialen zijn afgevoerd volgens het institutionele beleid. Zie de Tabel van Materialen en Aanvullend Bestand 1 voor de materialen en de bereiding van buffers en media die in dit werk zijn gebruikt.
1. Fluorescente markering en reconstitutie van patiëntafgeleide tumorgorganoïden (PDTO's) (Figuur 1)
- Verwijder oude Matrigel en start de celdissociatie.
- Plaats de kweekplaat in de BSC. Aspireer voorzichtig het medium uit de wells zonder de Matrigel-druppels te verstoren.
- Voeg 1–2 mL celdissociatie-enzym op kamertemperatuur per well toe. Pipetteer herhaaldelijk op en neer met een P1000 en een steriele celkrabber om de Matrigel-druppels volledig op te breken.
- Overbreng het celmengsel naar de gelabelde 15 mL conische buis. Voeg aan elke well nog 1 mL celdissociatie-enzym toe om residuele cellen weg te wassen en overbreng deze naar dezelfde buis. Pas het volume aan om ervoor te zorgen dat er ten minste 5 mL enzym per well is verzameld. Sluit de buis af en schud handmatig om grondig te mengen.
- Enzymatische dissociatie
- Plaats de buis in een waterbad van 37 °C. Incubeer 10 min en schud de buis elke 2–3 min handmatig om de dissociatie te bevorderen. Controleer visueel op volledige desaggregatie.
- Centrifugeer na dissociatie 3 min bij 300 × g bij 4 °C. Inspecteer de buis na centrifugatie.
- Als er geen pellet vormt en de Matrigel-wolk aanwezig blijft, voeg dan extra celdissociatie-enzym toe. Schud en plaats de buis 3–5 min terug in het waterbad. Als de pellet nog steeds niet vormt, plaats de buis dan 3 min op ijs zodat de matrix kan bezinken.
- Cel telling en levensvatbaarheidsbeoordeling
- Aspireer het supernatant zonder de pellet te verstoren. Voeg 10 mL van het +++ wasmedium toe.
- Centrifugeer 3 min bij 300 × g bij 4 °C. Resuspendeer de pellet in 1 mL PBS. Tritureer voorzichtig om een single-cell suspensie te verkrijgen.
- Meng 15 µL van de celsuspensie met 15 µL 0,4% Trypan Blauw. Breng 10 µL per kamer van een telplaat aan. Tel de levensvatbare cellen met een automatische teller of hemocytometer.
- Houd de cellen op ijs tijdens het tellen. Plaats een behandeld 6-well non-tissue plaat bij 37 °C om op te warmen voor latere seeding.
- Fluorescente labeling van tumorcellen
- Pas de celconcentratie aan naar 1 × 10⁶ levensvatbare cellen/mL in PBS.
- Reconstitueer CellTrace Far Red-kleurstof met 20 µL DMSO om een 1 mM stockoplossing te bereiden. Vortex en centrifugeer kort.
- Voeg 1 µL van de 1 mM stockoplossing toe per 1 mL celsuspensie (1 × 10⁶ cellen/mL), wat resulteert in een uiteindelijke kleurconcentratie van 1 µM. Keer voorzichtig om om te mengen. Incubeer 30 min bij 37 °C, beschermd tegen licht.
- Voeg 5 volumes PBS toe om de kleurstof weg te wassen. Centrifugeer 5 min bij 300 × g. Was tweemaal met PBS.
- Beoordeel de labeling-efficiëntie. Een zichtbaar gekleurde celpellet dient als kwalitatief acceptatiecriterium.
- Bepaal de levensvatbaarheid na kleuring via Trypan Blauw-exclusie en noteer de waargenomen levensvatbaarheid (80%).
OPMERKING: Ga alleen over tot embedding als de celpellet een uniforme kleur vertoont en de levensvatbaarheid na kleuring ≥80% is.
- Creatie van 3D cellulaire matrix-suspensie
- Resuspendeer de pellet in een passend volume kweekspecifiek medium op basis van de pelletgrootte (bijv. voor 900.000 cellen, voeg 500 µL medium toe; voor 1,8 miljoen cellen, voeg 1.000 µL medium toe).
- Voeg gekoelde Matrigel toe in een verhouding van 1:2 (medium:matrix) voor een uiteindelijke concentratie van 67% Matrigel. Meng grondig maar voorzichtig om belvorming te voorkomen (typisch doel: 300.000 cellen per well van een 6-well plaat).
- Uitplaten van 3D matrix-druppels
- Plate met een 200 µL pipette druppels van 100 µL: 5 druppels per well in 6-well platen. Plaats de platen 5 min in een incubator van 37 °C.
- Keer de platen om en incubeer nogmaals 40 min voor volledige polymerisatie. Bevestig de aanwezigheid van ingebedde cellen via microscopie.
- Voeg 4 mL medium per well toe (6-well plaat) en plaats de platen terug in de incubator. Kweek gedurende 72 u om de vorming van organoïden van 100–300 µm mogelijk te maken.
2. Voorbereiding van organoïden voor de killing assay
- Los de basaalmembraanmatrix op terwijl de 3D-organoïdestructuur behouden blijft.
- Haal de organoïdeplaten uit de incubator en breng ze over naar een biologische veiligheidskabinet. Aspireer voorzichtig het kweekmedium uit elke well zonder de Matrigel-koepels te verstoren.
OPMERKING: Wijs één well toe en laat deze ongemoeid voor volledige dissociatie en telling van de tumorcellen (zie sectie 2.2). - Voeg 1 mL ijskoude Cell Recovery Solution direct toe aan elke well om de basaalmembraanmatrix op te lossen. Verbreek de koepels mechanisch met een P1000-pipet en een steriele celschraper totdat de matrix volledig van het platoppervlak is losgekomen.
- Breng de suspensie van maximaal drie wells over in een voorgelabelde conische buis van 15 mL die op ijs is bewaard. Voeg nog eens 8 mL ijskoude Cell Recovery Solution toe aan de buis. Plaats de buis horizontaal op een rocker bij 4 °C gedurende 30 min om volledige oplossing van de matrix te waarborgen.
OPMERKING: Bescherm monsters tegen licht als er fluorescent labeling is uitgevoerd. - Centrifugeer na incubatie bij 300 × g gedurende 3 min bij 4 °C. Aspireer voorzichtig het supernatant volledig zonder het organoïdepellet te verstoren.
- Resuspendeer het pellet voorzichtig in compleet PDTO-medium met behulp van langzame pipettering via een wide-bore pipet om de intacte 3D-organoïdearchitectuur te behouden.
CRITIEK: Vermijd overmatig pipetteren of vortexen, omdat dit de 3D-structuur verstoort.
Als de resterende matrix na centrifugatie zichtbaar is, herhaal dan de incubatie in koude Cell Recovery Solution gedurende nog eens 10–15 min. Centrifugeer opnieuw en beoordeel de resultaten.
- Haal de organoïdeplaten uit de incubator en breng ze over naar een biologische veiligheidskabinet. Aspireer voorzichtig het kweekmedium uit elke well zonder de Matrigel-koepels te verstoren.
- Bepaal het aantal levensvatbare tumorcellen en pas de concentratie van de organoïdesuspensie aan.
- Dissocieer de gereserveerde well volledig met het cel-dissociatie-enzym zoals beschreven in Sectie 1. Incubeer bij 37 °C gedurende 5–7 min met tussentijdse trituratie.
- Neutraliseer met compleet PDTO-medium. Centrifugeer bij 300 × g gedurende 5 min. Resuspendeer in 1 mL medium.
- Meng 15 µL celsuspensie met 15 µL 0,4% Trypan Blue. Tel de levensvatbare cellen met een hemocytometer of een automatische teller.
- Bereken op basis van de telling van de levensvatbare cellen de vereiste verdunning om 200.000 levensvatbare cellen/mL in compleet PDTO-medium te bereiken
OPMERKING: Voorbeeldberekening: Voor een doelstelling van 20.000 tumorcellen per well in 100 µL is een werkconcentratie van 200.000 cellen/mL vereist. Bij het zaaien van een volledige 96-well imagingplaat (binnenste 60 wells) is het totale vereiste assayvolume 6 mL (100 µL × 60 wells), maar prepareer 7,2 mL vanwege 20% dood volume. Het vereiste aantal cellen is dus 6 mL × 200.000 cellen/mL = 1,2 × 10⁶ cellen en 7,2 mL × 200.000 cellen/mL = 1,44 × 10⁶ cellen.
- Platen van organoïden voor de killing assay
OPMERKING: Gebruik 96-well imagingplaten met zwarte wanden en een transparante bodem. Plateer elke conditie in ten minste drie technische replica's.- Dispenseer met een multichannel pipet 100 µL organoïdesuspensie per well om 20.000 levensvatbare tumorcellen per well te bereiken.
- Vul de buitenste wells van de plaat met 200 µL steriele PBS om verdamping en randeffecten te minimaliseren.
- Bevestig de uniforme distributie visueel onder de microscoop.
- Laat de organoïden 10–30 min bezinken bij 37 °C voordat de T-cellen worden toegevoegd.
- Handhaaf de continue expansie van organoïden.
- Neem de single-cell suspensie die tijdens het tellen is gegenereerd. Resuspendeer de cellen in kweekspecifiek medium. Voeg gekoelde Matrigel toe tot een eindconcentratie van 67%.
- Plateer in voorverwarmde 6-well suspensieplaten bij 100.000 cellen per well. Polymeriseer en bedek met medium zoals beschreven in Sectie 1. Plaats terug in de incubator voor verdere expansie.
3. Preparatie van tumor-reactieve T-cellen
- Expansie en collectie van tumor-infiltrerende lymfocyten (TILs)
- Isoleer en expandeer TILs uit tumorbiopten met behulp van eerder vastgestelde protocollen13,14.
- Registreer de volgende kenmerken voor elke TIL-preparatie: levensvatbaarheid na expansie: ≥80% (Trypan Blue exclusie); CD3⁺ zuiverheid: ≥85%; CD4⁺/CD8⁺ distributie: ≥30% CD8⁺ T-cellen, waarbij de CD4:CD8 ratio wordt gedocumenteerd; expansieduur en kweekcondities: 10–14 dagen in compleet RPMI-1640 aangevuld met 10% humaan AB-serum en recombinant humaan IL-2 (600 IU/mL) onder feeder-vrije condities; activatie/uitputtingsfenotype: PD-1 ≤ 50%, TIM-3 ≤ 30% en LAG-3 ≤ 20% van de CD3⁺ cellen op het moment van de assay; detecteerbare activatiemarkers (bijv. CD69 of CD25) na stimulatie; bewijs van tumorreactiviteit: meetbare antigeenspecifieke activiteit via ten minste één functionele assay (bijv. verhoogde IFN-γ productie, CD137/4-1BB upregulatie, CD107a degranulatie of cytotoxiciteit tegen autologe tumorcellen).
- Bevestig dat elke PDTO uitsluitend is gecocultiveerd met de bijbehorende autologe TIL-preparatie.
OPMERKING: Geef de voorkeur aan feeder-vrije expansiestrategieën om CD8+ cytotoxische populaties te behouden. Protocollen met bestraalde feeder PBMC's kunnen de expansie verschuiven richting CD4+ T-cellen. Feeder-vrije systemen behouden CD8+ T-cellen beter.
Beperk de TIL-expansie tot maximaal 14 dagen om uitputtingsfenotypes en verlies van cytotoxische functie te voorkomen. - Collecteer op de dag van de assay de T-cellen uit de kweekflessen. Breng de cellen over naar 15 mL conische buisjes. Centrifugeer 3 min bij 300 × g bij kamertemperatuur. Aspireer het supernatant volledig.
- Bereid T-cellen voor voor de functionele assay.
- Resuspendeer het pellet uit stap 3.1.4 in 1 mL basis T-celmedium (RPMI 1640 + 10% FBS + 1% Pen/Strep).
OPMERKING: Zorg dat het medium geen IL-2, IL-15, cytokinen, anti-CD3/CD28 beads of feeder-cellen bevat.
CRUCIAAL: Residu van cytokinen of activatiebeads zal de cytotoxiciteit kunstmatig verhogen en de interpretatie van de assay beïnvloeden. - Bepaal de celconcentratie en levensvatbaarheid met Trypan Blue. Ga alleen verder als de levensvatbaarheid ≥ 80% is.
- Resuspendeer het pellet uit stap 3.1.4 in 1 mL basis T-celmedium (RPMI 1640 + 10% FBS + 1% Pen/Strep).
- Bereid effector-naar-target (E:T) ratio's voor.
- Definieer de E:T ratio als T-cellen:tumorcellen.
OPMERKING: Het aantal tumorcellen dat wordt gebruikt om de E:T ratio te berekenen, wordt geschat op basis van een volledig gedissocieerde referentie-well die parallel is verwerkt (Sectie 2.2). Omdat organoïden als intacte driedimensionale structuren worden uitgezaaid, kunnen tumorcelaantallen niet direct worden bepaald in individuele cocultuur-wells zonder de assay te verstoren. De geschatte tumorcelconcentratie verkregen uit de referentie-well wordt uniform toegepast op alle wells die zijn bereid uit dezelfde gepoolde organoïdensuspensie.- Voor een 2:1 E:T ratio met 20.000 tumorcellen per well, voeg 40.000 T-cellen per well toe. Bereid T-cellen voor op 400.000 cellen/mL om 100 µL per well te kunnen toevoegen; dus 400.000 cellen/mL × 0,1 mL = 40.000 cellen.
- Bij het uitzagen van een volledige 96-well imaging-plaat (innerste 60 wells) is het benodigde T-celvolume 6 mL, en met 20% dood volume is het T-celvolume 7,2 mL.
Benodigde T-cellen: 6 mL × 400.000 cellen/mL = 2,4 × 10⁶ cellen
7,2 mL × 400.000 cellen/mL = 2,88 × 10⁶ cellen
OPMERKING: De geschatte E:T ratio is onderhevig aan inherente variabiliteit geassocieerd met driedimensionale organoïdenkweek, waaronder variatie in organoïdegrootte (doorgaans 100–300 µm in diameter), celverlies tijdens Matrigel-dissolutie en wassen (Sectie 2.1), en kleine variaties in pipetteren en celbezinking tijdens de plaatbereiding.
Om variabiliteit te minimaliseren, plaatst u minimaal drie technische replicaten per conditie, gebruikt u wide-bore pipetpunten en een zachte resuspensie om de integriteit van de organoïden te behouden, en bevestigt u visueel een uniforme organoïdedistributie over de wells voordat de T-cellen worden toegevoegd (Sectie 2.3).
- Definieer de E:T ratio als T-cellen:tumorcellen.
- Bereid het caspase-3 detectiereagens voor.
- Gebruik Caspase-3 substraat; voorraadconcentratie: 200 µM om een werkoplossing te bereiden door het substraat direct aan de T-celsuspensie toe te voegen tot een finale concentratie van 2 µM in de T-celsuspensie is bereikt. Meng voorzichtig.
OPMERKING: Te allen tijde beschermen tegen licht.
- Gebruik Caspase-3 substraat; voorraadconcentratie: 200 µM om een werkoplossing te bereiden door het substraat direct aan de T-celsuspensie toe te voegen tot een finale concentratie van 2 µM in de T-celsuspensie is bereikt. Meng voorzichtig.
- Optioneel: Drug screening of immuunmodulatiestudies
OPMERKING: Deze assay kan worden aangepast om kleine molecuulremmers (bijv. kinaseremmers, metabole modulatoren), immuuncheckpoint-remmers (bijv. anti-PD-1, anti-PD-L1) en combinatietherapieën te evalueren.- Pre-incubeer de geneesmiddelen met de organoïden gedurende 24–72 u voorafgaand aan de matrix-dissolutie en T-cel toevoeging, of voeg ze gelijktijdig met de T-cellen toe.
- Voeg vehicle-only controles toe voor elke conditie.
- Bij het testen van immuuncheckpoint-remmers, bevestig voorafgaand aan de assay de expressie van het target (bijv. PD-L1) op organoïden en PD-1 op T-cellen.
4. Stel de co-cultuur en experimentele controles in.
- Opzet van de co-cultuur
- Haal de plaat met organoïden in het 96-well imaging plateau uit de incubator en breng deze over naar de veiligheidskabinet. Resuspendeer de voorbereide T-cel suspensie (Sectie 3) vlak voor het uitplaten voorzichtig om een homogene distributie te garanderen (Figuur 2A).
- Voeg met een multichannel pipet 100 µL T-cel suspensie (bevattend het caspase-substraat bij 2 µM) toe aan elke well met 100 µL organoïden. Tik na toevoeging de plaat voorzichtig 2–3 keer aan om een gelijkmatige celdistributie te waarborgen.
OPMERKING: Vermijd contact met de bodem van de well om verstoring van de organoïden te voorkomen. Pipetteer niet op en neer in de wells. Overmatige agitatie verstoort de integriteit van de organoïden en verandert de kinetiek van de T-cel infiltratie. - Breng de plaat onmiddellijk over naar een live-cell imaging systeem om temperatuurschommelingen te minimaliseren.
OPMERKING: Finale concentraties in de well na 1:1 menging: het combineren van 100 µL organoïde suspensie (in Complete Organoid medium) met 100 µL T-cel suspensie (in basaal T-cel medium) halveert de concentratie van elke component. De finale concentraties zijn: B27 Supplement 0.5X; Nicotinamide 5 mM; glutamine-substituut 0.5X; Penicilline/Streptomycine 50 U/mL / 50 µg/mL; HEPES 5 mM; N-Acetylcysteïne 0.625 mM; Primocin 50 µg/mL; FGF-Basic (FGF-2) 0.5 ng/mL; FGF-10 10 ng/mL; PGE2 0.5 µM; SB202190 5 µM; EGF 25 ng/mL; Y-27632 5 µM; A-83-01 250 nM; NRG1 5 ng/mL; Noggin en R-Spondin 5% v/v elk; FBS (uit T-cel medium) 5%; caspase-3 substraat 1 µM finaal in de well.- Configureer de kinetische acquisitie in de live-cell imaging software door Scan on Schedule te selecteren om herhaalde beeldvorming over de volledige duur van de assay mogelijk te maken (Figuur 3B), kies het Standard scantype voor compatibiliteit tussen fasecontrast en fluorescentie (Figuur 3C), en specificeer de Fase-, Groen- en Roodkanalen op 10× met geoptimaliseerde acquisitietijden per kanaal (Figuur 3D).
- Stel de fluorescentie-acquisitietijd (belichting) per kanaal in op ongeveer 300–400 ms voor zowel het Groene als het Rode kanaal, en bevestig dat het 10× objectief is geselecteerd (beeldkalibratie 1,24 µm/px bij 10×).
OPMERKING: De representatieve dataset is verkregen op het geraadpleegde live-cell analysesysteem (zie de Tabel met Materialen). Beeldanalyse is uitgevoerd met de Basic Analyzer met een opgeslagen Analysis Definition (genaamd red-green-overlap-Bladder). - Stel de wells zo in dat er vier beelden per binnenwell van de 96-well plaat worden opgenomen, waarbij de scans elke 2 u gedurende maximaal 36 u worden herhaald (Figuur 3A,E).
- Start de beeldanalyse door een nieuwe Analysis Definition te maken en de Phase, Green en Red kanalen te activeren (Figuur 4A,B).
- Optimaliseer de segmentatieparameters van het rode kanaal, inclusief oppervlakte-drempelwaarden en randuitsluitingsfilters, om tumorobjecten te scheiden van debris en dubletten (Figuur 4C).
- Stel voor het Rode (tumor, CellTrace Far Red) kanaal het Segmentation Type in op Surface Fit met een Threshold van 2,0 RCU; activeer Edge Split met Edge Sensitivity = 0; stel Hole Fill = 0 µm2 en Adjust Size = 0 pixels in; en pas een minimum object Area filter van 50 µm2 toe (geen maximum-oppervlakte-, eccentriciteits- of intensiteitsfilters).
- Maak voor het Groene (NucView 488 caspase-3/7) kanaal de groene segmentatie met het Segmentation Type ingesteld op Surface Fit en een Threshold van 2,0 GCU; activeer Edge Split met Edge Sensitivity = 0; stel Hole Fill = 0 µm2 en Adjust Size = 0 pixels in; en pas geen oppervlakte- of intensiteitsfilters toe.
- Definieer de apoptotische tumor-readout als Groen + Rood dubbel-positieve objecten. Pas geen extra oppervlakte- of intensiteitsfilters toe op de overlap. Valideer de overlapcriteria aan de hand van de controlewells voor spontane apoptose en positieve killing, en pas vervolgens de analysedefinitie uniform toe op alle wells.
- Configureer de analysestatistieken voor beide kanalen om de proportie rood/groen dubbel-positieve apoptotische objecten te kwantificeren; controleer de segmentatie-overlays om een nauwkeurige identificatie van tumorobjecten te verifiëren (Figuur 4D).
- Selecteer scantijden en wells om alle experimentele tijdspunten te dekken (Figuur 4E), en bevestig dat voltooide analyses toegankelijk zijn voor review en tabelvormige of grafische data-export (Figuur 4F,G).
- Exporteer de analysedata op objectniveau en per well (per tijdspunt) voor verdere kwantificatie.
Resultaten
Tumororganoïdkweken die zijn gebruikt voor de hier getoonde resultaten werden gevestigd en uitgebreid tot voorbij passage 5 en bewaard in meer dan 6 cryovials met 1 × 10⁶ cellen per vial, waarbij de kweken voor elke assay opnieuw werden uitgebreid na ontdooiing. De maligne epitheliale identiteit en de afwezigheid van overgroei door normaal epitheel of stroma werden bevestigd door middel van targeted sequencing, wat de retentie aantoonde van de somatische mutaties die aanwezig waren in de ouderlijke tumor, en door histologische inbedding, die een organoïdmorfologie liet zien die overeenkwam met de pathologie van de oorspronkelijke tumor; alle lijnen werden vóór gebruik bevestigd als mycoplasma-negatief. Kweken die een normale epitheliale morfologie vertoonden of de moleculaire kenmerken van de ouderlijke tumor niet behielden, werden geïdentificeerd en uitgesloten, waardoor niet-tumorcontaminatie in de assay werd geminimaliseerd.
Alle getoonde resultaten (Figuur 1, Figuur 2, Figuur 3, Figuur 4 en Figuur 5) zijn gegenereerd uit één enkel gematcht organoïde-TIL-paar afkomstig van één patiënt met longadenocarcinoom. Het tumorstuk is verkregen via een chirurgische resectie die werd uitgevoerd zonder voorafgaande neoadjuvante behandeling, en de organoïden werden gebruikt bij passage 21. De organoïden werden ongeveer 12 weken in cultuur gehouden vanaf de initiële isolatie tot aan de getoonde assay (passage 21). De datum van de tumorresectie wordt beschouwd als beschermde gezondheidsinformatie en wordt daarom niet vermeld.
Na re-expansie worden de PDTO's teruggewonnen, geteld en uitgeplaat in imagingplates met 96 wells. Parallel hieraan worden TILs voorbereid in een effector-target ratio van 2:1, waarbij NucView 488 caspase-3 substraat onmiddellijk voor de opzet van de co-cultuur wordt toegevoegd (Figuur 2A). Representatieve beelden van een enkele well op een tussenliggend tijdstip tonen de verwachte output van vier kanalen: fasecontrast bevestigt de aanwezigheid van organoïden en immuuncellen (Figuur 2B); groene fluorescentie identificeert het caspase-3-geactiveerde apoptotische signaal (Figuur 2C); rode fluorescentie markeert selectief met CellTrace Far Red gelabelde tumororganoïden (Figuur 2D); en de samengevoegde overlay onthult rood/groen dubbel-positieve apoptotische tumorobjecten, de primaire readout van de assay (Figuur 2E). In afwezigheid van door TIL's gemedieerde killing wordt een minimaal spontaan groen signaal binnen rood-positieve structuren verwacht. Voor kwantificatie worden rood/groen dubbel-positieve (apoptotische) organoïden uitgedrukt als het percentage apoptotische PDTO's en uitgezet over de tijd als gemiddelde ± SEM, waarbij segmentatie-overlays een accurate identificatie van de tumorstructuur bevestigen (Figuur 4D).
In een representatief experiment waarbij zes kleine moleculen bij 1 µM werden getest, vertonen Drug 4 en Drug 5 een verhoogde apoptose ten opzichte van het vehikel vanaf ongeveer 24 u (Figuur 5A; ** p < 0,01, *** p < 0,001, **** p < 0,0001); vergelijking binnen één enkel representatief experiment. Violin plots bij het eindpunt van 36 u bieden een complementair beeld van de responsdistributie over de replica's, waaruit blijkt dat Drug 4 en Drug 5 de grootste toename van apoptotische PDTO's veroorzaken in dit representatieve experiment, terwijl Drug 3 een nominaal verminderde dodelijke respons vertoont, wat consistent is met mogelijke immunosuppressieve activiteit (Figuur 5B).
Om te bevestigen dat de gemeten apoptose een weerspiegeling is van het doden door tumorinfiltrerende lymfocyten (TIL) en niet van directe cytotoxiciteit door het geneesmiddel of een signaal afkomstig van effectorcellen, werd een representatieve verbinding (Drug 5) geëvalueerd in drie parallelle armen: co-cultuur (TIL + organoïde), alleen organoïden (zonder TIL) en alleen T-cellen, gedurende een tijdsverloop van 36 u (Figuur 5C).
De co-culture arm vertoonde een progressieve, tijdsafhankelijke accumulatie van apoptotische PDTO's, die na 36 h 19,2 ± 1,0% bereikte (gemiddelde ± SEM, n = 6 wells), terwijl de arm met enkel organoïden (zonder TIL) gedurende de gehele periode laag bleef en na 36 h slechts steeg tot 4,0 ± 0,3% (n = 3 wells), een 4,8-maal lager signaal. De controle met enkel T-cellen bleef gedurende het gehele tijdsverloop op de basislijn (0,0%; n = 3 wells), wat consistent is met het feit dat alleen tumororganoïden fluorescent zijn gelabeld en bevestigt dat de uitlezing niet afkomstig is van effectorcellen. Samen isoleren deze armen de netto, TIL-afhankelijke apoptotische doding boven de basislijn van de tumor alleen. Omdat de arm met enkel organoïden werd verkregen in aanwezigheid van het geneesmiddel, dient deze ook als controle voor geneesmiddel plus tumor (zonder TIL): bij aanwezigheid van het geneesmiddel maar zonder TIL's bleef de apoptose laag (4,0 ± 0,3% na 36 h), wat aangeeft dat de verhoogde doding in de bijbehorende co-culture arm niet kan worden verklaard door directe organoïde cytotoxiciteit voor deze verbinding. Een bijbehorende arm met enkel het geneesmiddel werd alleen voor Geneesmiddel 5 gegenereerd; voor de overige verbindingen wordt de verhoogde apoptose daarom beschreven als een gecombineerd effect dat nog niet specifiek aan immuunversterking kan worden toegeschreven, en een controle met enkel het geneesmiddel per verbinding wordt geïdentificeerd als een vereiste validatiestap.
Alle gegevens ter ondersteuning van de bevindingen van deze studie zijn zonder beperkingen beschikbaar. De ruwe time-lapse beeldseries, exportbestanden op objectniveau, Incucyte Analysis Definition-bestanden, segmentatieparameterinstellingen, metadata en de statistische brongegevens ten grondslag aan Figuur 5 zijn gedeponeerd in een openbare repository en zijn vrij toegankelijk onder een open licentie doi: 10.5281/zenodo.21676769. De brongegevens op objectniveau, plaatkaarten, segmentatie-instellingen en het analysis-definition-bestand dat is gebruikt om Figuur 5 te genereren, zijn opgenomen in Aanvullend Bestand 2.
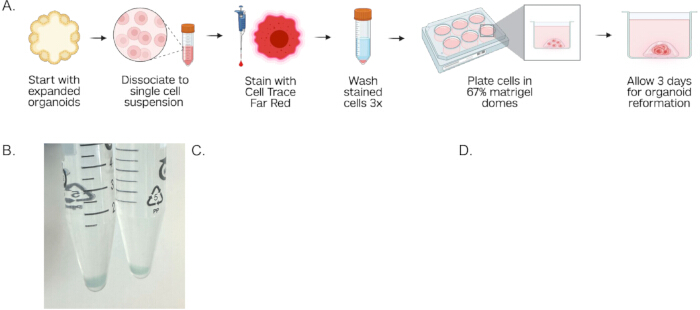
Figuur 1: Fluorescentielabeling en driedimensionale reconstitutie van patiëntafgeleide tumorganoïden. (A) Schematisch overzicht van de workflow voor de preparatie van PDTO's: organoïden worden gescheiden van Matrigel, gedissocieerd tot een enkelcel-suspensie, gelabeld met CellTrace Far Red-kleurstof, resuspendeerd in een Matrigel-matrix en uitgeplaat als 3D-druppels voor 72 u re-expansie voorafgaand aan de co-cultuurassay. (B) Representatieve foto van gelabelde celpellets in 15 mL buizen, waarbij de zichtbare kleur wijst op een succesvolle CellTrace Far Red-kleuring. (C) Fasecontrastafbeelding die een Matrigel-druppel toont met re-expandeerde tumorganoïden na 72 u cultuur. (D) Fluorescentie-overlayafbeelding die rood-gelabelde tumorganoïden toont (CellTrace Far Red), wat de intacte 3D-organoïdemorfologie en uniforme fluorescentielabeling bevestigt voorafgaand aan de opzet van de co-cultuurassay. Afbeeldingen zijn opgenomen bij 10× vergroting. Schaalbalken = 800 µm (C) en 400 µm (D). Afkorting: PDTO = patient-derived tumor organoid. Klik hier om een grotere versie van deze figuur te bekijken.
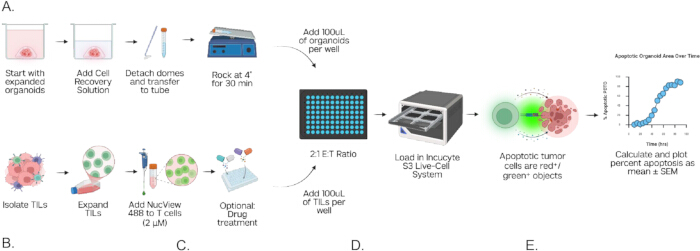
Figuur 2. Workstroom van de co-cultuur assay en representatieve fluorescentiebeelden van TIL-gemedieerde tumororganoïde-doding. (A) Schema van de volledige workstroom van de co-cultuur assay, waarbij twee parallelle voorbereidingsstromen worden weergegeven: (bovenste pad) herstel van organoïden uit Matrigel, tellen en uitplaten in 96-well imaging plates; (onderste pad) TIL-expansie, resuspensie en toevoeging van het caspase-3 substraat. Beide stromen komen samen bij een co-cultuur opstelling in een 96-well plate die in het live-cell imaging systeem is geplaatst voor kinetische acquisitie en geautomatiseerde analyse. Representatieve beelden van een co-cultuur well op één tijdstip: (B) fasecontrast, (C) groen fluorescentiekanaal dat het caspase-3-geactiveerde NucView 488 signaal in apoptotische cellen toont, (D) rood fluorescentiekanaal dat CellTrace Far Red-gelabelde tumororganoïden toont, en (E) samengevoegde fluorescentie-overlay die rood/groen dubbel-positieve apoptotische tumorobjecten demonstreert. Beelden zijn verkregen bij 10× vergroting. Schaalbalk = 400 µm. Afkorting: TIL = tumor-infiltrerend lymfocyt. Klik hier om een grotere versie van deze figuur te bekijken.
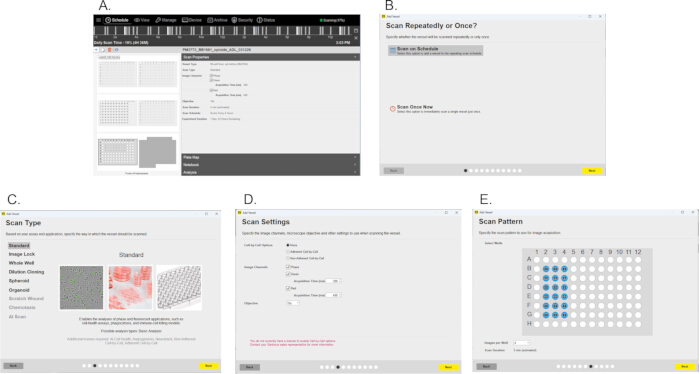
Figuur 3Instellen van de scansetup van het instrument en configuratie van de acquisitieparameters voor live-cell imaging. (A) Instrumentplanningsdashboard waarop een actieve scan te zien is met een plaatkaart en scaneigenschappen, waaronder het type vat, beeldkanalen, objectief, scanduur en acquisitieschema. (B) Herhaaldelijk scannen of één keer scannen? dialoog met Scan volgens schema geselecteerd om longitudinale kinetische beeldvorming over de volledige duur van de assay mogelijk te maken. (C) Selectiepaneel voor scantype met Standaard gekozen modus, die toepassingen voor fasecontrast- en fluorescentiegebaseerde analyse ondersteunt. (D) Scaninstellingen paneel met specificaties voor beeldkanalen (fase, groen, rood), acquisitietijden per kanaal en selectie van het 10× objectief.E) Scanpatroonpaneel waarin de putselectie voor de binnenste putten van een 96-wellplaat wordt getoond, geconfigureerd voor vier afbeeldingen per put met een geschatte scanduur. Klik hier om een grotere versie van deze figuur te bekijken.
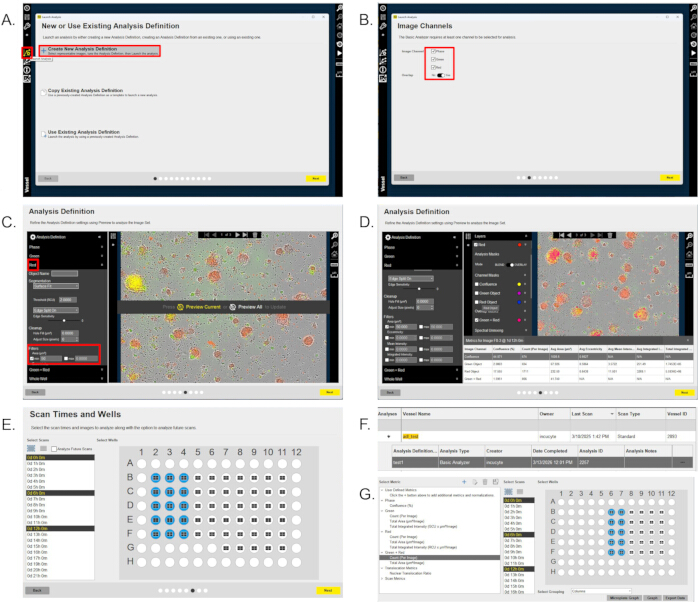
Figuur 4Opstelling van het instrument voor live-cell imaging en workflow voor beeldanalyse met behulp van geïntegreerde software. (A) Start analyse interface waarop de selectie van ... wordt getoond Maak nieuwe analysedefinitie aan om een nieuwe analysepijplijn te starten. (B) Selectie van beeldkanaal paneel met ingeschakelde fase-, groene en rode kanalen voor duale fluorescentie-acquisitie. (C) Definitie van de analyse interface met weergave van segmentatieparameters voor het rode kanaal, inclusief minimale en maximale oppervlaktedrempelwaarden, randuitsluiting en debrisfilters die worden gebruikt om tumorobjecten te identificeren. (D) Definitie van de analyse interface waarop de geconfigureerde analysemetrieken voor zowel het groene als het rode kanaal worden weergegeven, met een representatieve segmentatie-overlay die de nauwkeurige identificatie van rood/groen dubbelpositieve apoptotische tumorstructuren bevestigt. (E) scantijd en selectie van wells interface die wordt gebruikt om herhaalde beeldacquisitie te plannen over de binnenste putjes van de 96-well imagingplate. (F) Selecteer de voltooide analysedefinitie onder het beeldbestand. (G) Overzichtsweergave van de voltooide analysesamenvatting met weergave van vatgegevens, analysetype, beschikbare metrieken en opties voor data-export, inclusief export van microplate-grafieken, grafieken en tabellen. Klik hier om een grotere versie van deze figuur te bekijken.
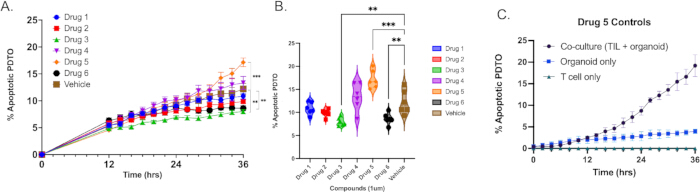
Figuur 5. Representatieve analyse van de effecten van kleine molecuulgeneesmiddelen op TIL-gemedieerde doding van tumororganoïden. (A) Kinetische dodingscurves die het percentage apoptotische PDTO's in de tijd tonen, vergeleken over meerdere behandelingscondities met kleine moleculen en een vehikelcontrole, weergegeven als gemiddelde ± SEM. (B) Vioolplots die de eindpuntanalyse na 36 uur illustreren als een alternatieve grafische benadering om de distributie van apoptotische responsen over de behandelingscondities te visualiseren, wat een beschrijvende vergelijking mogelijk maakt tussen drug-behandelde co-culturen en vehikelcontrole co-culturen binnen dit representatieve experiment. (C) TIL-afhankelijkheidscontroles voor een representatieve verbinding (Drug 5): percentage apoptotische PDTO's over een tijdverloop van 36 u voor de co-cultuur (TIL + organoïd), organoïd-only (geen-TIL) en T-cel-only armen, wat bevestigt dat het apoptotische signaal TIL-afhankelijk is en niet afkomstig is van effectorcellen (co-cultuur n = 6 wells; organoïd-only en T-cel-only n = 3 wells; gemiddelde ± SEM). Afkortingen: PDTO = patient-derived tumor organoid; TIL = tumor-infiltrating lymphocyte; SEM = standaardfout van het gemiddelde. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullend bestand 1: Bereiding van media en buffers. Klik hier om dit bestand te downloaden.
Aanvullend bestand 2. Brongegevens en analysebestanden voor Figuur 5.Deze ZIP-map bevat de brongegevens op objectniveau, plaatkaarten, segmentatie-instellingen en het analyse-definitiebestand dat is gebruikt voor het genereren van de Figuur 5 compound-screen en Drug 5 controle-analyses. Klik hier om dit bestand te downloaden.
Discussie
Dit protocol beschrijft een op beeldvorming gebaseerd protocol voor live-cell imaging om cytotoxische interacties te evalueren tussen patiënt-afgeleide tumororganoïden (PDTO's) en bijbehorende tumor-infiltrerende lymfocyten (TIL's). Door integratie van de driedimensionale tumorarchitectuur, autologe immuuneffectoren en real-time metingen van caspase-3-activering, maakt dit systeem een dynamische beoordeling mogelijk van apoptose van tumorcellen onder fysiologisch relevante omstandigheden. De workflow combineert gevestigde methoden voor de expansie van organoïden en TIL's met gecontroleerde co-culturecondities en geautomatiseerde beeldgebaseerde kwantificering, waardoor een beeldgebaseerde benadering voor immuunfunctionele studies wordt geboden. Omdat de voorafgaande stappen voor de isolatie en expansie van PDTO's en TIL's worden uitgevoerd volgens eerder gepubliceerde protocollen en hier niet volledig worden beschreven, is raadpleging van die bronreferenties in aanvulling op dit protocol vereist voor een volledige reproductie van deze workflow.
Een belangrijk voordeel van deze benadering is het behoud van tumor-intrinsieke heterogeniteit binnen organoïden. In tegenstelling tot tweedimensionale monolayer-systemen behouden organoïden hun driedimensionale structuur en tumorcel-celinteracties. Wanneer deze worden gecocultiveerd met bijbehorende TILs, maakt dit de evaluatie van T-celinfiltratie, contactafhankelijke doding en kinetische responsen over een bepaalde tijd mogelijk. Het gebruik van een caspase-3 geactiveerd fluorescent substraat maakt directe meting van apoptose mogelijk, in plaats van te vertrouwen op indirecte surrogaatmarkers zoals verlies van confluentie of ATP-gebaseerde endpoint-viabiliteitsassays.
Verschillende kritische parameters bepalen het succes van het experiment. De integriteit van de organoïden bij het uitplaten is essentieel; overmatige digestie tijdens de initiële tumordissociatie of excessieve mechanische disruptie tijdens het opzetten van de co-cultuur kan de organoïden fragmenteren, waardoor het aantal rode objecten kunstmatig toeneemt en de apoptoseberekeningen worden beïnvloed. Een consistente grootteverdeling van de organoïden verbetert de nauwkeurigheid van de segmentatie en vermindert de variabiliteit tussen de wells. Evenzo moeten nauwkeurige effector-to-target (E:T) ratio's over de replicates heen worden gehandhaafd, aangezien onnauwkeurige T-cel tellingen of klontering variabiliteit in de dodingskinetiek introduceren. Voorzichtig resuspenderen vlak voor het uitplaten minimaliseert dit probleem. In de getoonde representatieve dataset werd slechts één E:T ratio (2:1) geëvalueerd, in overeenstemming met de standaard operationele parameter vastgelegd in het protocol van ons laboratorium. Op basis van gevestigde literatuur over T-cel cytotoxiciteit wordt algemeen verwacht dat hogere E:T ratio's de tumordoding verhogen, en een formele titratie van deze parameter blijft een richting voor toekomstige validatie van dit platform. De selectie en validatie van segmentatieparameters vormen een andere cruciale stap. Drempelwaarden voor de minimale en maximale objectgrootte moeten debris uitsluiten terwijl intacte tumorstructuren worden vastgelegd; te permissieve drempelwaarden blazen de tumorcounts op, terwijl te restrictieve drempelwaarden de tumorlast onderschatten. Overlapcriteria voor rode en groene signalen moeten worden gevalideerd met zowel controles voor spontane apoptose als positieve dodingscontroles, en moeten consistent op alle wells worden toegepast om bias in de berekeningen van het apoptosepercentage te voorkomen.
De inclusie van passende controles versterkt de interpreteerbaarheid. Putjes met alleen tumorcellen leggen de basislijn vast voor de stabiliteit van de rode fluorescentie, terwijl controles met tumor plus substraat de spontane apoptose kwantificeren die onafhankelijk is van immuunactiviteit. Controles met alleen T-cellen bepalen het caspase-achtergrondsignaal dat afkomstig is van stervende lymfocyten. Positieve apoptosecontroles bevestigen de functionaliteit van het substraat en valideren de segmentatiedrempels. Deze controles zijn bijzonder belangrijk bij het vergelijken van onafhankelijke tumor-TIL-paren, aangezien de basale apoptosepercentages kunnen variëren tussen organoïde-lijnen.
Dit op beeldvorming gebaseerde platform biedt verschillende voordelen ten opzichte van traditionele cytotoxiciteitstesten, zoals chroomvrijgave of eindpuntmetingen van de levensvatbaarheid op basis van ATP. Real-time beeldvorming maakt continue, niet-destructieve monitoring van tumor-immuuninteracties mogelijk, waardoor een precieze kinetische resolutie van immuun-gemedieerde doding wordt gerealiseerd. In tegenstelling tot eindpuntmetingen, die slechts één enkele cumulatieve meting opleveren en voorbijgaande of sequentiële cytotoxische gebeurtenissen kunnen maskeren, onderscheidt longitudinale beeldvorming snelle vroege cytotoxische responsen van vertraagde of progressieve apoptose. Deze temporele resolutie maakt de identificatie mogelijk van lag-fasen die geassocieerd zijn met T-celactivatie of infiltratie, piekintervallen van doding en plateaufasen die T-celuitputting of resistentie van de doelcel kunnen weerspiegelen. Herhaalde metingen in dezelfde put verminderen de variabiliteit tussen monsters en elimineren de noodzaak voor parallelle platen op meerdere tijdstippen. Omdat de tumorlast en de apoptotische conversie bij elk interval gelijktijdig worden gekwantificeerd, is dynamische normalisatie mogelijk, wat de nauwkeurigheid verbetert in vergelijking met bulk-lysis-assays die geen onderscheid kunnen maken tussen immuundoding en spontane celdood. Collectief biedt deze benadering een fysiologisch informatievere en mechanistisch beter interpreteerbare beoordeling van de cytotoxische functie dan traditionele assays op basis van één enkel tijdstip.
Er moeten echter verschillende beperkingen in overweging worden genomen. Hoewel uit patiënten afgeleide tumororganoïden de natuurlijke tumorgestel nauwkeuriger nabootsen dan conventionele tweedimensionale culturen, modelleren ze de stromale, vasculaire of myeloïde componenten van de tumormicro-omgeving niet volledig. Daarnaast biedt beeldvorming bij 10× vergroting voldoende doorvoer voor longitudinale analyse, maar kan deze individuele celinteracties binnen dicht gepakte organoïden mogelijk niet onderscheiden. Beeldvorming met een hogere vergroting kan de ruimtelijke resolutie verbeteren, maar vermindert het gezichtsveld en de doorvoer van de assay. Deze assay kwantificeert specifiek de caspase-3-afhankelijke apoptotische dood van tumorcellen. T-cel-gemedieerde cytotoxiciteit die plaatsvindt via caspase-onafhankelijke mechanismen, waaronder necrose of necroptose, wordt niet gedetecteerd door deze uitlezing en moet daarom worden geïnterpreteerd binnen het bereik van de assay. Bovendien zouden enkelceldissociatie, labeling en re-expansie gedurende 72 h in principe kunnen selecteren op subpopulaties; de structuren van 100–300 µm die zich in deze periode opnieuw vormen, behouden desalniettemin de multicellulaire driedimensionale architectuur van de ouderlijke organoïden, en er werd geen duidelijke morfologische verandering waargenomen ten opzichte van de ouderlijke culturen, hoewel er geen formele vergelijking van de clonale samenstelling voor en na de re-expansie is uitgevoerd. De huidige studie bevat geen farmacologische positieve controle-benchmark, zoals een immuuncheckpointremmer (bijv. anti-PD-1) in een PD-L1⁺/PD-1⁺ organoïde-TIL-paar, met de verwachte toename van doding, om het dynamische bereik van de assay formeel te kalibreren; de inclusie van een dergelijke referentie-immuunversterkende stof is een belangrijke volgende validatiestap, en de hier gerapporteerde vergelijkende resultaten van de verbindingen moeten dienovereenkomstig worden geïnterpreteerd. Een bijbehorende controle met alleen het geneesmiddel (zonder TIL) is in deze voorbeelden alleen uitgevoerd voor Drug 5; een relatieve toename in celdood kan niet worden toegeschreven aan de andere verbindingen, aangezien deze geen per-verbinding controle met alleen het geneesmiddel hebben. Orthogonale validatie van deze beeldgebaseerde uitlezing op hetzelfde monster tegenover een onafhankelijke gouden standaard voor celdood, zoals flowcytometrische Annexine V-kleuring of confocale enkelcelbevestiging, is hier niet uitgevoerd en is geïdentificeerd als een cruciale volgende stap om de specificiteit van de rood/groen dubbel-positieve uitlezing verder vast te stellen17.
Een aanvullende overweging is dat de fluorescentie van CellTrace Far Red geleidelijk wordt verdund bij elke ronde van tumorceldeling. Bijgevolg kan proliferatie tijdens de herstelperiode van 72 h van de organoïden en het daaropvolgende imaging-venster de fluorescentie-intensiteit op latere tijdstippen verminderen, wat potentieel het aantal detecteerbare CellTrace-positieve tumorobjecten verlaagt en het berekende percentage apoptose licht verhoogt door een kleinere noemer. Om deze potentiële storende factor te monitoren, werd het aantal CellTrace Far Red-positieve objecten longitudinaal gevolgd gedurende de gehele imaging-periode, en werden de wells geëvalueerd op substantiële afnames in het rood-positieve signaal, onafhankelijk van apoptose-geassocieerde caspase-3/7 activatie. Er werd geen significante, onverklaarde afname van CellTrace-positieve objecten waargenomen over het imaging-venster, wat suggereert dat kleurstofverdunning waarschijnlijk geen belangrijke bijdrage heeft geleverd aan de waargenomen veranderingen in de apoptose-metingen. Dit blijft echter een inherente beperking van tumorceltracking op basis van fluorescentieverdunning en dient te worden meegewogen bij de interpretatie van metingen op late tijdstippen.
Biologische variabiliteit tussen patiëntafgeleide monsters vormt zowel de kracht als een uitdaging van dit assayplatform. Hoewel deze variabiliteit klinisch relevante tumorheterogeniteit weerspiegelt, moet een passend experimenteel ontwerp rekening houden met biologische variatie bij het bepalen van de studiegrootte en de vereisten voor replicatie. Elk uniek tumor–TIL-paar moet worden beschouwd als een onafhankelijk biologisch replicaat, terwijl technische replicaaten worden gebruikt om de assayvariabiliteit binnen een monster te beoordelen. De representatieve dataset getoond in Figuur 5 weerspiegelt een enkel organoïde–TIL-paar dat in technisch triplikaat is geanalyseerd; daarom beschrijft de gepresenteerde two-way repeated-measures ANOVA de assayvariabiliteit binnen dat individuele monster en mag deze niet worden geïnterpreteerd als een beoordeling van de biologische variabiliteit tussen patiënten. Het aantal onafhankelijke organoïde–TIL-paren dat voor elke studie nodig is, moet worden bepaald met prospectieve power-berekeningen op basis van de verwachte effectgrootte, biologische variabiliteit en experimentele doelstellingen. Technische replicaaten moeten worden opgenomen om de precisie van de assay te kwantificeren, maar mogen niet worden beschouwd als vervanging voor onafhankelijke biologische replicaaten
Toekomstige modificaties van dit protocol kunnen immuuncheckpoint-blokkade, cytokine-modulatie, kleine-molecuulremmers of genetische perturbaties omvatten om de mechanismen die T-cel-gemedieerde cytotoxiciteit reguleren te ontleden. Integratie met single-cell transcriptomics of ruimtelijke imaging zou het mechanistische inzicht verder kunnen vergroten. Bovendien kan aanpassing naar high-throughput 384-well formats toepassingen voor drug screening mogelijk maken. Dit platform is ook gemakkelijk aanpasbaar voor het evalueren van chimere antigeenreceptor T-cel (CAR-T) therapieën in plaats van polyklonale TIL's, waarbij enkel bevestiging van de expressie van het doelantigeen op PDTO's voorafgaand aan de co-cultuur en de passende inclusie van antigeen-negatieve organoïde-controles vereist is om de on-target specificiteit te bevestigen18,19,20.
Samenvattend biedt dit protocol een kwantitatieve, op beelden gebaseerde methode om TIL-gemedieerde cytotoxiciteit tegen autologe tumorgenoïden in real time te meten. Nauwkeurige aandacht voor de integriteit van de organoïden, consistente effector-ratio's, gevalideerde segmentatiedrempelwaarden en geschikte controles garanderen een betrouwbare kwantificering. Dit systeem is breed toepasbaar voor studies naar tumorimmunologie, modulatie van immuun-checkpoints, optimalisatie van adoptieve celtherapie en gepersonaliseerde functionele immuunprofilering.
Openbaarmakingen
B.D.H. is mede-oprichter van en consultant voor Faeth Therapeutics. O.E. heeft een kapitaalbelang in Volastra Therapeutics en Owkin, maar dit staat geen relatie tot dit project. Noch Faeth Therapeutics, noch Volastra Therapeutics, noch Owkin hebben financiering, materialen, apparatuur, software, intellectueel eigendom of input voor het studieontwerp geleverd voor dit werk. De overige auteurs verklaren geen concurrerende belangen te hebben.
OPENBAARMAKING AI-GEBRUIK:
Tijdens de voorbereiding van dit werk heeft/hebben de auteur(s) Claude gebruikt voor taalredactie. Na gebruik van deze tool/dienst heeft/hebben de auteur(s) de inhoud beoordeeld en naar behoefte bewerkt en aanvaard(en) zij de volledige verantwoordelijkheid voor de inhoud van het gepubliceerde artikel.
Dankbetuigingen
Wij spreken onze dank uit aan het Englander Institute for Precision Medicine at Weill Cornell Medicine voor hun genereuze steun en toegang tot institutionele middelen. Dit werk werd ook ondersteund door de MERIT Program Gift / The Medical Excellence Foundation, Inc. (subsidienummer 61500857), toegekend aan Olivier Elemento en Benjamin D. Hopkins. De financier had geen enkele rol in het studieontwerp, de gegevensverzameling, de analyse of de opstelling van het manuscript. De HEK293T-producerende cellijnen die Noggin en R-Spondin uitscheiden, waren een vriendelijke gift van het laboratorium van Yu Chen (Memorial Sloan Kettering Cancer Center) en werden gegenereerd zoals eerder beschreven21.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 15 mL Conische Buisjes | Corning | 430791 | Celverzameling en centrifugatie |
| 6-well platen zonder weefselkweekbehandeling | Greiner Bio-One | 657185 | 3D organoïde plating en expansie |
| A-83-01 (TGF-beta remmer) | Tocris Bioscience | 2939 | Compleet organoïdmedium |
| Advanced DMEM/F12 | Thermo Fisher Scientific | 12634010 | Mediumcomponent |
| B27 Supplement (50X), serumvrij | Thermo Fisher Scientific | 17504044 | Compleet organoïdmedium |
| Zwarte, 96-well optische-bodem microplaat, zwart, TC-oppervlak | Nunc | 165305 | Live-cell imaging plaat voor dodingstest |
| Cell Recovery Solution | Corning | 354253 | Koude oplossing van Matrigel met behoud van de 3D organoïde structuur |
| CellTrace Far Red Celproliferatie Kit | Thermo Fisher Scientific | C34564 | Fluorescente markering van tumorcellen (rood kanaal) |
| Biosafety Cabinet Klasse II | Thermo Fisher Scientific | 1375 (1300 Series A2, 4 ft) | Aseptische hantering onder BSL-2 |
| CO2-incubator (37 °C, 5% CO2, bevochtigd) | Thermo Fisher Scientific | 51030400 (Heracell VIOS 160i) | Organoïde expansie en co-kweek incubatie |
| Countess 3 Automatische Celsteller | Thermo Fisher Scientific (Invitrogen) | AMQAX2000 | Automatische celtelling/viabiliteit (gebruikt met Countess slides, C10312) |
| Countess Telplaten (of hemocytometer) | Thermo Fisher Scientific | C10312 | Automatische celtelling |
| Dimethylsulfoxide (DMSO), steriel | Sigma-Aldrich | D2650 | Reconstitutie van CellTrace Far Red kleurstof |
| Dulbecco's Phosphate-Buffered Saline (PBS), 1X, zonder Ca2+/Mg2+ | Corning | 21-040-CVR | Celsuspensie voor telling en kleurstofmarkering |
| Foetaal Bovien Serum (FBS), hitte-geïnactiveerd | Thermo Fisher Scientific | 16140071 | Mediumcomponent |
| GlutaMAX-I Supplement (100X) | Thermo Fisher Scientific | 35050061 | Mediumcomponent |
| GraphPad Prism (v10.6.1) | GraphPad Software / Dotmatics | Version 10.6.1 | Statistische analyse (two-way RM ANOVA) en plotting |
| HEK293T Producer Cellijnen (Noggin- en R-Spondin-secreterend) | Yu Chen Lab, Memorial Sloan Kettering Cancer Center (MSKCC) | Gift (zie Gao et al., Cell 2014) | Productie van geconditioneerd medium (Sectie 0.2); vriendelijke gift van het Yu Chen Lab (MSKCC); gegenereerd zoals in Gao et al., Cell 2014, DOI: 10.1016/j.cell.2014.08.016 |
| HEPES (1 M oplossing) | Thermo Fisher Scientific | 15630080 | Mediumcomponent |
| Humaan Recombinant FGF-10 | Thermo Fisher Scientific | PHG0204 | Compleet organoïdmedium |
| Humaan Recombinant FGF-Basic (FGF-2) | Thermo Fisher Scientific | PHG0261 | Compleet organoïdmedium |
| Incucyte Base Software (v2024B) | Sartorius | Integrated software v2024B | Planning van beeldacquisitie en automatische segmentatie/analyse |
| Incucyte S3 Live-Cell Analyse Systeem | Sartorius | 4647 | Live-cell imaging instrument (37 °C, 5% CO2); fase + dual-fluorescentie acquisitie |
| Omgekeerde Fasecontrast / Fluorescentiemicroscoop | Nikon | Eclipse Ts2-FL | Organoïde QC en visuele segmentatiebevestiging |
| Laboratoriumvriezer (−20 °C / −80 °C) | Thermo Fisher Scientific | TSX40086A (TSX Series −86 °C) | Opslag van groeifactor- en geconditioneerde-medium aliquots |
| Laboratorium Rocker / Schudelement (4 °C compatibel) | Benchmark Scientific | B3D2300 (BenchRocker 3D) | Matrix-oplossing in koude Cell Recovery Solution (Sectie 2.1) |
| Matrigel Basement Membrane Matrix, Growth Factor Reduced | Corning | 356231 | 3D matrix voor inbedding en expansie van organoïden |
| Muiz Recombinant EGF | PeproTech | 315-09 | Compleet organoïdmedium |
| N-Acetylcysteïne | Sigma-Aldrich | A9165 | Compleet organoïdmedium |
| Nicotinamide | Sigma-Aldrich | N0636 | Compleet organoïdmedium |
| Noggin (geconditioneerd medium of recombinant) | Lab-bereide aliquot | — | Compleet organoïdmedium |
| NRG1 (Neureguline-1 / Hereguline) | R&D Systems | 396-HB | Compleet organoïdmedium |
| NucView 488 Caspase-3 Substraat (200 µM stock) | Biotium | 30029 | Real-time detectie van caspase-3 activatie (apoptose-uitlezing, groen kanaal) |
| Penicilline-Streptomycine Oplossing (100X) | Thermo Fisher Scientific | 15140122 | Mediumcomponent |
| PGE2 (Prostaglandine E2) | Sigma-Aldrich | P0409 | Compleet organoïdmedium |
| Primocin | InvivoGen | ant-pm-1 | Compleet organoïdmedium |
| Gekoelde Centrifuge (swinging-bucket, 300 × g, 4 °C) | Eppendorf | 022628187 (Centrifuge 5810 R, A-4-62 rotor) | Dissociatie- en wascentrifugatiestappen |
| RPMI 1640 Medium | Thermo Fisher Scientific | 11875093 | Basismedium voor T-cel resuspensie |
| R-Spondin (geconditioneerd medium of recombinant) | Lab-bereide aliquot | — | Compleet organoïdmedium |
| SB202190 (p38 MAPK remmer) | Sigma-Aldrich | S7076 | Compleet organoïdmedium |
| Staurosporine | Sigma-Aldrich | S4400 | Positieve dodingcontrole; pro-apoptotisch agens om caspase-substraatfunctionaliteit te bevestigen |
| Stericup Steriel Vacuümfiltratiesysteem (0.22 µm) | MilliporeSigma (Merck) | S2GPU05RE | Filtratie/productie van Noggin en R-Spondin geconditioneerde media (Sectie 0.2) |
| Steriele Celscraper | Corning | 3008 | Mechanische disruptie van Matrigel-koepels |
| Trypanblauw Oplossing, 0.4% | Thermo Fisher Scientific | 15250061 | Viabiliteitsbeoordeling via kleurstofuitsluiting |
| TrypLE Express Enzym (1X) | Thermo Fisher Scientific | 12604021 | Enzymatische dissociatie van Matrigel en organoïden |
| Waterbad (37 °C) | Thermo Fisher Scientific | TSGP05 (Precision GP 05) | Enzymatische dissociatie en opwarmen van media |
| Y-27632 (ROCK Remmer) | Sigma-Aldrich | Y0503 | Compleet organoïdmedium |
Referenties
- Reck M, et al. Pembrolizumab versus chemotherapy for PD-L1-positive non-small-cell lung cancer. N Engl J Med. 2016;375(19):1823-33.
- Larkin J, et al. Overall survival in patients with advanced melanoma who received nivolumab versus investigator’s choice chemotherapy in CheckMate 037: a randomized, controlled, open-label phase III trial. J Clin Oncol. 2018;36(4):383-90.
- Weber J, et al. Adjuvant nivolumab versus ipilimumab in resected stage III or IV melanoma. N Engl J Med. 2017;377(19):1824-35.
- Karimi MA, et al. Measuring cytotoxicity by bioluminescence imaging outperforms the standard chromium-51 release assay. PLoS One. 2014;9(2):e89357.
- Kaja S, Payne AJ, Naumchuk Y, Koulen P. Quantification of lactate dehydrogenase for cell viability testing using cell lines and primary cultured astrocytes. Curr Protoc Toxicol. 2017;72:2.26.1-2.26.10.
- Crouch SPM, Kozlowski R, Slater KJ, Fletcher J. The use of ATP bioluminescence as a measure of cell proliferation and cytotoxicity. J Immunol Methods. 1993;160(1):81-8.
- Pauli C, et al. Personalized in vitro and in vivo cancer models to guide precision medicine. Cancer Discov. 2017;7(5):462-77.
- Lee SH, et al. Tumor evolution and drug response in patient-derived organoid models of bladder cancer. Cell. 2018;173(2):515-28.e17.
- Dijkstra KK, et al. Challenges in establishing pure lung cancer organoids limit their utility for personalized medicine. Cell Rep. 2020;31(5):107588.
- Veninga V, Voest EE. Tumor organoids: opportunities and challenges to guide precision medicine. Cancer Cell. 2021;39(9):1190-201.
- Wang HM, et al. Using patient-derived organoids to predict locally advanced or metastatic lung cancer tumor response: a real-world study. Cell Rep Med. 2023;4(2):100911.
- Betge J, et al. The drug-induced phenotypic landscape of colorectal cancer organoids. Nat Commun. 2022;13(1):3135.
- Dijkstra KK, et al. Generation of tumor-reactive T cells by co-culture of peripheral blood lymphocytes and tumor organoids. Cell. 2018;174(6):1586-98.e12.
- Cattaneo CM, et al. Tumor organoid-T-cell coculture systems. Nat Protoc. 2020;15(1):15-39.
- Votanopoulos KI, et al. Model of patient-specific immune-enhanced organoids for immunotherapy screening: feasibility study. Ann Surg Oncol. 2020;27(6):1956-67.
- Harter MF, et al. Analysis of off-tumour toxicities of T-cell-engaging bispecific antibodies via donor-matched intestinal organoids and tumouroids. Nat Biomed Eng. 2024;8(4):345-60.
- Gelles JD, Chipuk JE. Robust high-throughput kinetic analysis of apoptosis with real-time high-content live-cell imaging. Cell Death Dis. 2016;7(12):e2493.
- Schnalzger TE, et al. 3D model for CAR-mediated cytotoxicity using patient-derived colorectal cancer organoids. EMBO J. 2019;38(12):e100928.
- Ehlen L, et al. Lung tumouroids as a testing platform for precision CAR T cell therapy. Nat Biomed Eng. 2026;10:815-31.
- Logun M, et al. Patient-derived glioblastoma organoids as real-time avatars for assessing responses to clinical CAR-T cell therapy. Cell Stem Cell. 2025;32(2):181-90.e4.
- Gao D, et al. Organoid cultures derived from patients with advanced prostate cancer. Cell. 2014;159(1):176-87.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar