Dit protocol beschrijft stapsgewijze procedures voor het evalueren van de resistentie van het gehele organisme tegen hittestress, oxidatieve stress, ER-stress en mitochondriële stress. Daarnaast biedt het methoden om te evalueren of neuronen een rol spelen bij de stressresistentie.
Methodenartikel
Methoden voor het meten van resistentie tegen meerdere stressoren in Caenorhabditis elegans
In dit artikel
Samenvatting
Samenvatting
Organismen worden gedurende hun leven blootgesteld aan een verscheidenheid aan omgevings- en cellulaire stressfactoren. Het vermogen om verschillende stressfactoren te weerstaan correleert nauw met de gezondheidsspanne en levensduur van organismen. Caenorhabditis elegans (C. elegans) is een ideaal modelorganisme voor het meten van stressbestendigheid om onderzoek naar geconserveerde moleculaire mechanismen ten grondslag aan stressbestendigheid te vergemakkelijken. C. elegans beschikt bovendien over een vereenvoudigd zenuwstelsel dat fundamenteel is voor het begrijpen van de neurale basis van stressbestendigheid. Hier presenteren wij methoden voor het meten van de stressbestendigheid van C. elegans onder vier verschillende stresscondities: hittestress, stress van het endoplasmatisch reticulum (ER), mitochondriale stress en oxidatieve stress. Wormcohorten worden geplaatst op vaste agarplaten en blootgesteld aan uitdagende temperaturen voor hittestress, of aan agar die verschillende doses bevat van verbindingen die ER-, mitochondriale of oxidatieve stress induceren. We hebben toenemende doses van elke stressfactor ingesteld en de optimale dosis getitreerd om, als voorbeeld, verschillen in stressbestendigheid te bepalen in een stam met geablateerde RIC-neuronen vergeleken met een wildtype-stam. Onder stresscondities wordt de overleving van C. elegans per uur of per dag gemonitord, en overlevingscurves worden uitgezet en vergeleken om verschillende vermogens tot stressbestendigheid in verschillende C. elegans-stammen te identificeren. Deze bieden een reproduceerbare aanpak voor het evalueren van de resistentie tegen meerdere stressfactoren over een reeks doses en tijdschalen in wildtype, mutanten of neuronaal gemanipuleerde stammen van C. elegans, en helpen ook bij het onthullen van de moleculaire en neurale mechanismen die ten grondslag liggen aan meerdere stressfactoren.
Inleiding
Organismen ervaren gedurende hun leven verschillende soorten omgevingsstress. De meeste stressoren, waaronder hitte, hypoxia, straling, oxidatieve stress, osmotische stress en pathogene stress, veroorzaken cellulaire dysfunctie en verstoringen van de homeostase die intracellulaire stressresponsen triggeren. Organismen ontwikkelen sterk geconserveerde stressrespons-routes om om te kunnen gaan met dynamische omgevingsuitdagingen en stressoren. Deze geconserveerde stressrespons-routes omvatten hittestressresponsen (HSR)1, unfolded protein responses (UPR) in het endoplasmatisch reticulum (ER) en mitochondriën2, en de respons op oxidatieve stress3. Hoofdregulatoren van verschillende stressrespons-routes, meestal transcriptiefactoren, induceren de expressie van responsieve genen om de proteostase te herstellen en het cellulair overleven te bevorderen4. Deze responsen omvatten de synthese van chaperonnes die verkeerd gevouwen eiwitten opnieuw vouwen en de verwijdering van beschadigde eiwitten via eiwitafbraak4. Het uitblijven van de activering van stressresponsen resulteert in de accumulatie van beschadigde eiwitten in het cytoplasma of organellen, wat leidt tot cellulaire en weefseldysfunctie. Een ongebalanceerde cellulaire stressrespons is geassocieerd met een verscheidenheid aan chronische ziekten, variërend van neurodegeneratie tot het metabool syndroom5,6. In tegenstelling hiermee leidt een adequate activering van stressrespons-routes tot een verbeterde gezondheidsspanne en een substantiële verlenging van de levensduur7. Daarom is het belangrijk om de moleculaire mechanismen van stressresistentie te onderzoeken om de beschermende stressrespons in te zetten voor gezondheidsverbetering. Hierdoor is het noodzakelijk om reproduceerbare methoden en technieken vast te stellen om stressresistentie in levende dieren nauwkeurig te kwantificeren.
Ontdekkingen in de afgelopen 15 jaar hebben een rol van neurale signalering aangetoond bij het verbeteren van de stressbestendigheid in meerdere soorten8. Eerste bevindingen toonden aan dat de HSR en ER UPR in neuronen voldoende zijn om de stressrespons in niet-neurale weefsels te activeren, waarmee het concept van cel-niet-autonome regulatie van stressbestendigheid werd vastgesteld8,9,10. Sinds deze initiële ontdekking heeft toenemend bewijs aangetoond dat meerdere stressbestendigheidspaden reageren op omgevingsprikkels en stressbestendigheid bevorderen via neurale signalering. Specifiek bevorderen de HSR10,11, ER UPR12,13, mitochondriale unfolded protein response (UPRmt) 14,15 en de oxidatieve stressrespons3 elk op cel-niet-autonome wijze via neuronen de stressbestendigheid. Het mechanisme van cel-niet-autonome regulatie van stressbestendigheid is geconserveerd in organismen, waaronder de fruitvlieg D. melanogaster16,17,18,19 en muizen20,21.
Om onderzoek te faciliteren naar de rol van neuronen bij stressbestendigheid onder meerdere stressfactoren, presenteren we hier een systematisch protocol om de resistentie te testen onder vier neuronale gereguleerde stressfactoren: hittestress, ER-stress, mitochondriale stress en oxidatieve stress. C. elegans, een hanteerbaar modelorganisme, werd gebruikt om de stressbestendigheid tegen deze vier stressfactoren te meten. Het gebruik van C. elegans in assays voor stressbestendigheid maakt het mogelijk om de activering van stressresponsen niet alleen op cellulair niveau, maar ook op organisme-niveau te bestuderen.
De stressresponspaden die worden geactiveerd door hittestress, ER-stress, mitochondriale stress en oxidatieve stress zijn geconserveerd en functioneel belangrijk in diverse organismen, waaronder mensen22,23,24,25. Hittestress leidt tot eiwitmisvouwing en aggregatie en activeert de hitte-shockrespons, die essentieel is voor het handhaven van de eiwithomeostase26. De fysiologische omgevingstemperatuur van C. elegans is 20 °C en een hogere temperatuur boven de 25 °C induceert hittestress in C. elegans27. Wij induceren hittestress bij drie verhoogde uitdagende temperaturen: 30 °C, 35 °C en 37 °C.
Het ER is de primaire locatie voor eiwitsynthese en -vouwing28. De accumulatie van ongevouwen of verkeerd gevouwen eiwitten in het ER-lumen activeert unfolded protein responses om de proteostase te herstellen29. ER-stress kan worden geïnduceerd door een chemische stof, tunicamycine, die N-gebonden glycosylering blokkeert en leidt tot de accumulatie van verkeerd gevouwen eiwitten in het ER-lumen30. Een verhoogde resistentie tegen de stress door eiwitmisvouwing in het ER-lumen vertaalt zich in een verhoogde overleving12. We stellen wormen bloot aan verschillende doses tunicamycine (25–200 µg/mL) en evalueren hun gevoeligheid door hun overleving te meten.
Mitochondriën zijn het cellulaire metabole centrum en de "energiefabrieken" van de cel. Reactieve zuurstofverbindingen (ROS) en ongevouwen eiwitten in de mitochondriën triggeren mitochondriale unfolded protein responses en induceren mitochondriale stress31. Mitochondriale stress kan worden geïnduceerd door antimycine A, een remmer van mitochondriaal complex III die de elektronenoverdracht blokkeert en de productie van ROS veroorzaakt32. Wij gebruiken verschillende doses antimycine A (5–80 µg/mL) om een optimale dosis te bepalen voor de assay voor mitochondriale stressresistentie.
Oxidatieve stress wordt gewoonlijk veroorzaakt door omgevingstoxinen en door het metabolisme geproduceerde cellulaire vrije radicalen. Oxidatieve stress veroorzaakt schade aan eiwitten, lipiden en DNA in alle organismen33. Paraquat, een herbicide chemische stof die elektronen overdraagt aan zuurstof en een overmatige hoeveelheid superoxide-radicalen genereert, is een sterke inductor van oxidatieve stress34. Wij passen vier toenemende doses paraquat toe (2.5–20 mM) en tonen een bereik van maximale overleving van 3 tot 12 dagen aan in C. elegans.
Deze vier stresscondities zijn eenvoudig te produceren om zeer reproduceerbare resultaten van stressresistentie in C. elegans te verkrijgen. Methoden voor stressresistentie zijn eerder beschreven35,36,37,38,39,40. In tegenstelling tot een eerder gepubliceerde review waarin verschillende stressoren en overlevingsanalyses werden samengevat35, stelt dit artikel gedetailleerde, haalbare stapsgewijze protocollen vast om reproduceerbare en consistente stressassays uit te voeren. Verschillende eerder gepubliceerde protocollen richtten zich op één specifieke stressassay, zoals hittestress36 of oxidatieve stress38; terwijl dit protocol alle vier de verschillende stressassays demonstreert: hitte-, ER-, mitochondriale en oxidatieve stress. Eerder beschreven protocollen voor stressassays maken bovendien gebruik van een andere eindpuntanalyse met fluorescente reporters, zoals pathway-specifieke fluorescente transcriptionele reporters voor ER-, mitochondriale en oxidatieve stress40, of de hittestressrespons39; terwijl dit protocol overlevingsassays gebruikt om de algehele gezondheid van C. elegans effectief te meten. Belangrijk is dat dit protocol dosistitraties van alle vier de assays presenteert om referenties te bieden voor het effectieve dosisbereik dat voor stressassays kan worden gekozen; dit protocol optimaliseerde de tijdschaal (van uren tot dagen) in verschillende stressassays; daarnaast hebben we een nieuwe rol van een neuron gepresenteerd dat meerdere stressresponsen reguleert, als voorbeeld om te testen of neuronen stressresistentie reguleren.
De ontwikkeling van een stresbestendigheidsassay vereist de selectie van een geschikte stressor en een betrouwbare beoordelingsmaatstaf. Overlevingsassays voor C. elegans zijn krachtige instrumenten gebleken voor het meten van fysiologische processen, waaronder levensduur, stresbestendigheid en pathologische infecties. Een belangrijk voordeel van het gebruik van C. elegans voor overlevingsassays is dat gesynchroniseerde wormen van dezelfde leeftijd eenvoudig te prepareren en te analyseren zijn, dankzij hun zelfbevruchting, grote nestgrootte en korte ontwikkelingscyclus van drie dagen van ei tot jonge volwassene. Mannetjes komen zelden voor in een natuurlijke populatie van gekweekte C. elegans en worden daarom over het algemeen niet gebruikt voor overlevingsassays, inclusief dit protocol, maar worden hoofdzakelijk gebruikt voor genetische kruisingen35. Vergeleken met andere methoden voor eindpuntevaluatie (bijv. fluorescerende reporters, eiwit- en lipideaccumulatie), zijn overlevingsassays effectief in het meten van de algehele gezondheid van C. elegans en kosten ze relatief weinig tijd om te voltooien, gewoonlijk van enkele uren tot verschillende weken, afhankelijk van de dosis stressors. Wij gebruiken overlevingspercentages als de primaire indicator voor stresbestendigheid over verschillende stammen van C. elegans. Overleving wordt bepaald door motiliteit en respons op zachte mechanische stimulatie; een gebrek aan respons op stimulatie wordt gebruikt om mortaliteit te definiëren in C. elegans stresassays. Overlevingsassays in C. elegans kunnen worden uitgevoerd in zowel vaste als vloeibare media met bacteriële voeding35. Echter, vloeibaar medium is niet de natuurlijke habitat van wormen, en wormen worden gedwongen constant te klonteren in de vloeibare cultuur, wat leidt tot een kortere overlevingscurve41. Hier gebruiken we vaste media om de effecten van verschillende stressorconcentraties op de overleving van wild-type en neuron-geablateerde mutante wormen te beoordelen. Deze concentratie-titratiegegevens kunnen richtlijnen bieden voor andere onderzoekers die vergelijkbare stresbestendigheidsassays uitvoeren.
Protocol
Experimenten met C. elegans werden uitgevoerd aan de Kansas State University, Manhattan, KS, USA, in overeenstemming met de institutionele richtlijnen voor biosafety en laboratoriumvoering. Aangezien C. elegans een ongewerveld modelorganisme is, was voor deze studie geen goedkeuring van een ethische commissie voor gewervelde dieren vereist. De details van alle gebruikte reagentia, apparatuur, software en stammen zijn opgenomen in de Tabel met Materialen.
1. Maak NGM (Nematode Growth Medium) platen en bereid Escherichia coli OP50 voor
- Maak NGM-platen
- Weeg 3 g NaCl, 17 g agar (poedervorm) en 2,5 g peptoon af, en voeg 900 mL ultrapuur gedeïoniseerd (dd) H2O toe2O en vul aan tot een eindvolume van 1 L, en steriliseer door middel van autoclaveren. Laat het medium afkoelen tot ongeveer 60 °C in een 60 °C waterbad
- Voeg 1 mL 1 M CaCl₂ toe2 (bereid in ddH₂O)2O en filtergesteriliseerd), 1 mL cholesterol 5 mg/mL (bereid in ethanol en filtergesteriliseerd), 1 mL 1 M MgSO4 (bereid in ddH2O en filtergesteriliseerd), en 25 mL van 1 M KP-buffer.
Om KP-buffer te maken, combineert u 130 mL van 1 M K2HPO4 met 870 mL 1 M KH2PO4 bereid in ddH2O2O. Stel na grondig mengen de pH in op 6,0. Na bereiding is de gemeten pH doorgaans dicht bij 6,0 en is er geen verdere aanpassing nodig. Het acceptabele pH-bereik voor de KP-buffer is 5,8–6,2, met een streefwaarde van pH 6,0. Controleer voor gebruik of de uiteindelijke pH ongeveer 6,0 is. Stel de pH indien nodig bij naar 6,0 met behulp van 1 M K2HPO4 of 1 M KH2PO4. - Meng grondig en giet het medium (NGM) in platen (petrischalen). Giet voor platen van 60 mm 10 mL NGM-medium per plaat; giet voor platen van 35 mm 3 mL NGM-medium per plaat. Laat de NGM-agarplaten op kamertemperatuur (22–25 °C) op een vlakke bench gedurende ten minste 24 uur vóór het uitplaten van het bacteriële voedingsmedium.
WAARSCHUWING: Gebruik bij het bereiden en gieten van gesmolten NGM-agar hittebestendige handschoenen en passende laboratorium-PBM om brandwonden en blootstelling aan hete vloeistof te voorkomen.
- Bereid voor Escherichia coli OP50-bacteriën als voedsel voor Caenorhabditis elegans
- Uitstrijken Escherichia coli OP50-bacteriën op een Luria-Bertani (LB) agarplaat en incuberen bij 37 °C overnacht (LB-agarplaten: voeg 1 g NaCl, 1 g tryptone, 0,5 g gistextract en 1,5-2,0 g agarpoeder toe aan 100 mL ddH2O)2O, steriliseren door middel van autoclaveren gedurende 20 min, afkoelen tot 50-60 °C en giet het medium in de platen. Plaats deze op een schone, vlakke bench en laat ze drogen).
- Inoculeer een enkele kolonie in 100 mL vloeibaar LB-medium (LB-medium: voeg 1 g NaCl, 1 g tryptone en 0,5 g gistextract toe aan 100 mL ddH2O)2Steriliseer door 20 min. te autoclaveren. Laat afkoelen tot onder 37 °C vóór inoculatie).
- Kweek de bacteriën in een 37 °C schudincubator totdat de bacteriële suspensie een optische dichtheid bij 600 nm (OD600) van ongeveer 0,3 bereikt in een 10-voudige verdunning van de bacteriële suspensie (100 µL van bacteriële suspensie vermengen met 900 µL van LB-medium). Oogst en bewaar de bacteriesuspensie bij 4 °CHet bacteriële voedingsmedium kan tot een week worden bewaard voordat het op een NGM-plaat wordt geënt.40.
- Gebruik een repeat-pipetteur om OP50-bacteriën op de NGM-platen aan te brengen. Zaai 200 µL voor agarplaten van 60 mm, en 100 µL voor 35 mm agarplaten. Laat de geëntte NGM-platen op kamertemperatuur (~22–25 °C) op een vlakke werkbank gedurende ten minste 24 u voor gebruik. Laat de platen niet langer dan 48 u bij kamertemperatuur staan. Plaats de gezaaide platen in een schone plastic doos en bewaar deze bij 4 °C.
OPMERKING: Bij gebruik van niet-geventileerde platen kan het langer duren voordat de gezaaide OP50 is opgedroogd.
WAARSCHUWING: Hanteer E. coli Kweek OP50-culturen volgens de geldende microbiologische praktijken en draag een laboratoriumjas, handschoenen en oogbescherming. Desinfecteer werkoppervlakken en voer bacterieel afval af volgens de institutionele biosafety-procedures.
2. Onderhoud en synchronisatie van C. elegans
De workflow van deze sectie is samengevat in Figuur 1A.
- Houd de wormen op 20 °C op NGM-platen gezaaid met OP50 door volwassen wormen twee keer per week over te brengen naar nieuwe met OP50 gezaaide NGM-platen om uithongering van de wormen te voorkomen. Plaats 20–40 gravide volwassen wormen op een verse met OP50 gezaaide NGM-plaat met een platina pick, en verwijder eventuele larven en eieren die samen met de gravide volwassenen van de oorspronkelijke plaat zijn overgebracht. Het gebruik van een bekend aantal gravide wormen vergemakkelijkt een nauwkeurige verslaglegging en garandeert een volledige verwijdering ervan in de volgende stap (sectie 1.2).
OPMERKING: Een totaal van 20–40 gravide wormen is voldoende om in 2 h 80–120 eieren te produceren, gebaseerd op de conditie van een wild-type stam (N2). De eienlegging bevindt zich in het optimale venster wanneer gravide volwassenen zich op de eerste dag (dag 1) van het volwassen stadium bevinden. Pas voor stammen met een lagere of hogere fecunditeit het aantal gravide wormen dienovereenkomstig aan. Het doel van deze stap is om voldoende eieren te verkrijgen die zullen uitgroeien tot gesynchroniseerde wormen voor de daaropvolgende stressassays. - Verwijder na ongeveer 2 h de gravide wormen van de plaat. Tel het aantal gravide wormen dat bij deze stap wordt verwijderd en bevestig dat alle 20–40 op de plaat geplaatste gravide wormen zijn verwijderd.
- Incubeer de platen met eieren bij 20 °C totdat de wormen het late L4-stadium bereiken voor de stressassays. Synchroniseer de wormen naar het L4-stadium om variabiliteit door verschillen in volwassen leeftijd en reproductieve status te minimaliseren12,35,37,38,40,42,43. Bij 20 °C bereiken wormen in de wild-type stam het uniform gesynchroniseerde late L4-stadium ongeveer 54–58 h nadat de eieren op vaste agarplaten zijn gelegd (eigen waarneming en 36,40).
OPMERKING: Pas voor stammen met een vertraagde ontwikkeling de timing van de synchronisatie naar het late L4-stadium aan op basis van hun specifieke ontwikkelsnelheid.
WAARSCHUWING: Behandel C. elegans volgens passende microbiologische praktijken en draag een laboratoriumjas en handschoenen om blootstelling aan biologisch materiaal te minimaliseren en contaminatie te voorkomen.
3. Stressconditie en gegevensverzameling
- Hittestress-assay
De workflow van deze sectie is samengevat in Figuur 1B.- Synchroniseer de wormen tot het late L4-stadium (sectie 2) en houd ze aan 20 °COverbreng de gesynchroniseerde wormmen in het L4-stadium naar 35 mm NGM-platen gezaaid met OP50 (sectie 1), waarbij 4 platen per groep als technische replica's worden gebruikt, met 30–35 wormmen per plaat. Raadpleeg sectie 4 voor de opzet van de biologische replica's.
- Plaats de platen met de wormen in het late L4-stadium in een 30, 35 of 37 °C incubator. Zorg ervoor dat de incubator de ingestelde temperatuur bereikt voordat de platen met de geanalyseerde wormen erin worden geplaatst. De gemiddelde overleving van wild-type wormen bij 30, 35 of 37 °C varieert van ongeveer 4 uur tot 3 dagen (Figuur 2B–D) vergeleken met een gemiddelde overleving van ongeveer 20 dagen onder fysiologisch niet-stressvolle omstandigheden (Figuur 2A).
CRUCIALE STAP: Plaats alle assayplaten met de agarzijde naar beneden in een enkele laag in de 35 °C incubator om een snelle en uniforme temperatuurequilibratie mogelijk te maken.
OPMERKING: Tijdens heat stress-assays bij 30, 35 of 37 °Cde meeste wormen leggen geen eieren. In de zeldzame gevallen waarin eieren worden gelegd, wordt waargenomen dat geen van de eieren uitkomt. Daarom is het overzetten van wormen naar nieuwe platen niet nodig. - Tel het aantal dode wormen bij elk tijdstip voor elke plaat van de technische replica's en noteer dit aantal op een scoreblad. De overleving van de wormen wordt elk uur gescoord onder 35 °C of 37 °C hittestress en éénmaal daags onder 30 °C hittestress. De scoring wordt uitgevoerd onder een dissectiemicroscoop bij kamertemperatuur. Verwijder tijdens de scoring alleen de plaat die wordt onderzocht uit de incubator; alle overige platen moeten op de vastgestelde hittestresstemperatuur blijven om onderbreking van de hittestresblootstelling te minimaliseren. Deze werkwijze helpt om consistente experimentele condities voor alle monsters te handhaven.
CRUCIALE STAP: Om onderbrekingen van de blootstelling aan hittestress te minimaliseren, mag elke plaat tijdens elke scoringssessie niet langer dan 3 min uit de incubator worden gehaald. Afhankelijk van de overleving van de wormen op verschillende tijdstippen tijdens de stressassay, duurt het scoren van een plaat bij kamertemperatuur doorgaans ongeveer 30 s tot 3 min. De volgorde van scoren is van belang gezien de tijd die wordt besteed aan handmatige scoring. Wij bevelen aan om één technisch replica per conditie te scoren, totdat alle technische replica's in alle condities zijn voltooid. Stel bijvoorbeeld bij drie condities/groepen (A, B en C) met elk 4 technische replicaplaten de scorevolgorde als volgt in: A1, B1, C1 → A2, B2, C2 → A3, B3, C3 → A4, B4, C4. - Beoordeel de overleving van de wormen op basis van of er een bewegingsreactie op milde fysieke stimulatie kan worden waargenomen. Actief bewegende wormen worden als levend gescoord en behoeven geen fysieke stimulatie. Voor wormen die geen spontane beweging vertonen, worden de wormen voorzichtig gestimuleerd door tweemaal met een platina draadpick de posterieure lichaamsregio aan te raken. Het uitblijven van een bewegingsreactie wordt als dood genoteerd en de dode worm wordt na registratie van de plaat verwijderd. Een observatie van ongeveer 2 s na elke aanraking is voldoende om te bepalen of er een bewegingsreactie aanwezig is. Een handmatige telraam-teller wordt aanbevolen om het aantal levende en dode wormen tijdens het tellen vast te leggen en tel-fouten te verminderen. Om ervoor te zorgen dat alle wormen één keer en niet herhaaldelijk worden geteld, wordt een transparante plastic vel met raster onder de plaat geplaatst, of wordt er een raster op de bodem van de plaat getekend om de platen in rastersecties voor het tellen te verdelen.
OPMERKING: Plaats de platen onmiddellijk na het scoren terug in de incubator met de warmteconditie. - Houd de overleving van de wormen met regelmatige tussenpozen bij totdat alle dieren dood zijn of zijn gecensureerd volgens de vooraf gedefinieerde criteria. Verzamel de geregistreerde overlevingsgegevens en gebruik deze om overlevingscurves te genereren voor verdere analyse.
- ER-stressanalyse
De workflow van deze sectie is samengevat in Figuur 1C.- Bereid mediumplaten voor voor de ER-stressassay. Voeg tunicamycine-stamloplossing toe (10 mg/mL in dimethylsulfoxide (DMSO), bewaard bij –20 °C) in het vloeibare NGM-medium (uit sectie 1.1.2) tot een eindconcentratie van 25, 50, 100, of 200 µg/mLBijvoorbeeld: voeg voor 1 L ER-stress-assaymedium 2,5, 5, 10 of 20 mL tunicamycine-stamoplossing (10 mg/mL in DMSO) toe om een uiteindelijke concentratie van 25, 50, 100 of 200 µg/mL tunicamycine in de mediumplaten. Indien een onbehandelde controle in de assay is opgenomen, voeg dan dezelfde hoeveelheid DMSO (2,5, 5, 10 of 20 mL) toe aan het bijbehorende controlemedium.
CRUCIALE STAP: Koel het geautoclaveerde NGM-medium af tot ongeveer 55 °C terwijl er geroerd wordt, voegt u tunicamycine toe tot de gewenste eindconcentratie. Meng het geheel grondig voordat u 3 mL van het NGM-medium met tunicamycine in elke 35 mm plaat giet. Ent elke 35 mm agarplaat met 100 µL OP50-bacteriën (sectie 1.2). NGM-platen gezaaid met OP50 en voorzien van tunicamycine kunnen worden bewaard bij 4 °C tot één week voor gebruik.
WAARSCHUWING: Tunicamycine is gevaarlijk en moet in een chemische zuigkast worden gehanteerd met een laboratoriumjas, handschoenen en oogbescherming. Vermijd inademing en contact met de huid of ogen. - Synchroniseer de wormen tot het late L4-stadium (sectie 2) en houd ze bij 20 °CBreng de gesynchroniseerde wormen in het L4-stadium over naar 35 mm NGM-platen gezaaid met OP50 en houdend tunicamycine, waarbij 4 platen per groep als technische replica's worden gebruikt, met 30–35 wormen per plaat. Raadpleeg sectie 4 voor de opzet van de biologische replica's.
- Incubeer alle platen bij 20 °CRegistreer dagelijks het aantal dode wormen. De gemiddelde overleving van wildtype wormen onder 25, 50, 100 of 200 µg/mL tunicamycine varieert van ongeveer 8 tot 11 dagen (Figuur 2E,F) vergeleken met een gemiddelde overleving van ongeveer 20 dagen onder fysiologisch niet-gestreste omstandigheden (Figuur 2A).
OPMERKING: Bij de assay voor ER-stress geïnduceerd door tunicamycine worden er eieren gelegd, maar deze komen niet uit op agarplaten die tunicamycine bevatten. Het overzetten van wormen naar nieuwe platen is daarom niet nodig. - Tel dagelijks het aantal dode wormen op elke plaat van de technische replica's en noteer dit aantal op een scoreblad. De scoring wordt handmatig uitgevoerd onder een dissectiemicroscoop op de bench bij kamertemperatuur. Actief bewegende wormen worden als levend gescoord; fysieke stimulatie is in dat geval niet nodig. Voor wormen die geen spontane beweging vertonen, worden de wormen voorzichtig gestimuleerd door twee keer met een platina-draadprikker tegen de posterieure lichaamsregio te tikken. Het uitblijven van een reactie wordt als dood genoteerd, waarna de dode worm na registratie van de plaat wordt verwijderd. Een handmatige telraam wordt aanbevolen om een nauwkeurige telling te garanderen. Om er zeker van te zijn dat alle wormen één keer en niet herhaaldelijk worden geteld, kan een transparante plastic vel met raster onder de plaat worden geplaatst, of kan er een raster op de bodem van de plaat worden getekend om de platen in rastersecties voor het tellen te verdelen.
OPMERKING: Plaats de platen direct na het scoren terug in de incubator. Houd de wormen ongeveer 24 uur in de incubator voordat het volgende scoremoment plaatsvindt. - Controleer dagelijks de overleving van de wormen totdat alle dieren dood zijn of zijn gecensureerd volgens de vooraf gedefinieerde criteria. Verzamel de geregistreerde overlevingsgegevens en gebruik deze om overlevingscurves te genereren voor verdere analyse.
- Bereid mediumplaten voor voor de ER-stressassay. Voeg tunicamycine-stamloplossing toe (10 mg/mL in dimethylsulfoxide (DMSO), bewaard bij –20 °C) in het vloeibare NGM-medium (uit sectie 1.1.2) tot een eindconcentratie van 25, 50, 100, of 200 µg/mLBijvoorbeeld: voeg voor 1 L ER-stress-assaymedium 2,5, 5, 10 of 20 mL tunicamycine-stamoplossing (10 mg/mL in DMSO) toe om een uiteindelijke concentratie van 25, 50, 100 of 200 µg/mL tunicamycine in de mediumplaten. Indien een onbehandelde controle in de assay is opgenomen, voeg dan dezelfde hoeveelheid DMSO (2,5, 5, 10 of 20 mL) toe aan het bijbehorende controlemedium.
- Mitochondriële stressanalyse
De workflow van dit onderdeel is samengevat in Figuur 1D.- Maak platen met medium voor de mitochondriële stresstest. Voeg antimycine A-stamoplossing toe (5 mg/mL in DMSO, bewaard bij –20 °C) in het vloeibare NGM-medium (uit sectie 1.1.2) tot een eindconcentratie van 5, 10, 20, 40 of 80 µg/mLVoeg bijvoorbeeld voor 1 L medium voor de mitochondriale stresstest 1, 2, 4, 8 of 16 mL antimycine A-stamsoplossing (5 mg/mL in DMSO) toe. voor een eindconcentratie van 5, 10, 20, 40, of 80 µg/mL antimycine A in de mediumplaten. Indien een onbehandelde controle in de assay is opgenomen, voeg dan dezelfde hoeveelheid DMSO (1, 2, 4, 8 of 16 mL) toe aan het overeenkomstige controlemedium.
CRUCIALE STAP: Koel het geautoclaveerde NGM-medium af tot ongeveer 55 °C terwijl u roert, voegt u antimycine A toe tot de gewenste eindconcentratie. Meng grondig voordat u 3 mL van het NGM-medium met antimycine A in elke 35 mm plaat giet. Ent elke 35 mm agarplaat met 100 µL OP50-bacteriën (sectie 1.2). Met OP50 geënt NGM-platen met antimycine A kunnen worden bewaard bij 4 °C tot één week voor gebruik.
WAARSCHUWING: Antimycine A is gevaarlijk en moet worden gehanteerd in een chemische zuurkast met het dragen van een laboratoriumjas, geschikte handschoenen en oogbescherming. Vermijd inademing en contact met de huid of ogen. - Synchroniseer de wormen tot het late L4-stadium (sectie 2) en houd ze aan 20 °COverbreng de gesynchroniseerde wormmen in het L4-stadium naar 35 mm NGM-platen gezaaid met OP50 en bevattend antimycine A, waarbij 4 platen per groep als technische replica's worden gebruikt, met 30–35 wormmen per plaat. Raadpleeg sectie 4 voor de opzet van de biologische replica's.
- Incubeer alle platen bij 20 °CNoteer dagelijks het aantal dode wormen.
CRUCIALE STAP: Vanwege problemen met het uitkomen van eitjes en de ontwikkeling van larven moeten de wormen gedurende de eerste 10 dagen elke twee dagen naar nieuwe platen worden overgebracht. Stop met het overbrengen wanneer er geen nieuwe larven of eitjes meer op de plaat worden waargenomen. Alle technische replica's moeten hetzelfde aantal overbrengingen ondergaan. Wanneer bijvoorbeeld slechts één plaat een overbrenging vereist, moeten alle platen in deze biologische replica tegelijkertijd worden overgebracht. De gemiddelde overleving van wild-type wormen onder 5, 10, 20, 40, of 80 µg/mL antimycine A varieert van ongeveer 1,5 tot 5 dagen (Figuur 2G,H) vergeleken met een gemiddelde overleving van ongeveer 20 dagen bij afwezigheid van fysiologische stress (Figuur 2A).
OPMERKING: De assay voor antimycine A-geïnduceerde mitochondriële stress vereist dat de wormen gedurende de eerste 10 dagen elke twee dagen naar verse platen worden overgeplaatst. Deze overplaatsing wordt uitgevoerd om overbevolking en uithongering te voorkomen en om de experimentele wormen te onderscheiden van hun nakomelingen. - Tel dagelijks het aantal dode wormen op elke plaat van de technische replica's en noteer dit aantal op een scoreblad. De scoring wordt handmatig uitgevoerd onder een dissectiemicroscoop op de werkbank bij kamertemperatuur. Actief bewegende wormen worden als levend gescoord; fysieke stimulatie is hiervoor niet nodig. Voor wormen die geen spontane beweging vertonen, dient men de wormen voorzichtig te stimuleren door tweemaal met een platinendraadje de posterieure lichaamsregio aan te raken. Het uitblijven van een reactie wordt geregistreerd als dood, waarna de dode worm na registratie van de plaat wordt verwijderd. Een handmatige telmeter wordt aanbevolen om een nauwkeurige telling te waarborgen. Om ervoor te zorgen dat alle wormen één keer worden geteld en niet herhaaldelijk, plaatst men een transparante plastic vel met raster onder de plaat, of tekent men een raster. op de onderkant van de plaat om de platen te verdelen in rastersecties voor het tellen.
OPMERKING: Plaats de wormen onmiddellijk na het scoren terug in de incubator. Houd de wormen ongeveer 24 uur in de incubator voordat de volgende scoring plaatsvindt. - Controleer dagelijks de overleving van de wormen totdat alle dieren zijn gestorven of zijn gecensureerd volgens de vooraf gedefinieerde criteria. Verzamel de geregistreerde overlevingsgegevens en gebruik deze om overlevingscurven te genereren voor verdere analyse.
- Maak platen met medium voor de mitochondriële stresstest. Voeg antimycine A-stamoplossing toe (5 mg/mL in DMSO, bewaard bij –20 °C) in het vloeibare NGM-medium (uit sectie 1.1.2) tot een eindconcentratie van 5, 10, 20, 40 of 80 µg/mLVoeg bijvoorbeeld voor 1 L medium voor de mitochondriale stresstest 1, 2, 4, 8 of 16 mL antimycine A-stamsoplossing (5 mg/mL in DMSO) toe. voor een eindconcentratie van 5, 10, 20, 40, of 80 µg/mL antimycine A in de mediumplaten. Indien een onbehandelde controle in de assay is opgenomen, voeg dan dezelfde hoeveelheid DMSO (1, 2, 4, 8 of 16 mL) toe aan het overeenkomstige controlemedium.
- Oxidatieve stress-assay
De workflow van deze sectie is samengevat in Figuur 1E.- Maak mediumplaten voor de oxidatieve stress-assay. Voeg paraquat-stockoplossing toe (0,5 M in ddH2O)2O, bewaard bij –20 °C) in het vloeibare NGM-medium (uit sectie 1.1.2) tot een eindconcentratie van 2,5, 5, 10 of 20 mM.
CRUCIALE STAP: Koel het geautoclaveerde NGM-medium af tot ongeveer 55 °C terwijl u roert, voegt u paraquat toe tot de gewenste eindconcentratie. Meng grondig voordat u 3 ml van het NGM-medium met paraquat in 35 mm platen giet. Ent elke 35 mm agarplaat met 100 µL OP50-bacteriën (sectie 1.2). OP50-bacteriën kunnen 2–3 dagen voor het tijdstip van de assay worden gezaaid. OP50-gezaaide NGM-platen met paraquat kunnen worden bewaard bij 4 °C tot maximaal één week voor gebruik.
WAARSCHUWING: Paraquat is zeer toxisch en moet worden gehanteerd in een chemische zuurkast met geschikte handschoenen, een laboratoriumjas en oogbescherming. Vermijd inademing, inslikken en contact met de huid of ogen. - Synchroniseer de wormen tot het late L4-stadium (sectie 2) en houd ze aan 20 °CBreng de gesynchroniseerde wormen in het L4-stadium over naar 35 mm NGM-platen gezaaid met OP50 en houdend paraquat, waarbij per groep 4 platen als technische replica's worden gebruikt, met 30–35 wormen per plaat. Raadpleeg sectie 4 voor de opzet van de biologische replica's.
- Incubeer alle platen bij 20 °CNoteer dagelijks het aantal dode wormen. De gemiddelde overleving van wild-type wormen bij 2,5, 5, 10 of 20 mM paraquat varieert van ongeveer 2,5 tot 5 dagen (Figuur 2I,J), vergeleken met een gemiddelde overleving van ongeveer 20 dagen bij afwezigheid van fysiologische stress (Figuur 2A).
OPMERKING: Bij de assay voor paraquat-geïnduceerde oxidatieve stress is het niet nodig om de wormen over te brengen naar nieuwe platen. Er is een beperkt aantal larven aanwezig op de paraquatplaten; deze blijven gedurende de gehele assay gestagneerd in het ontwikkelingsstadium vóór of op L2-niveau. Zij interfereren niet met de identificatie van gesynchroniseerde cohorten en veroorzaken geen uithongering. Gezien de fysieke stress die door het overbrengen van wormen kan ontstaan, wordt het niet aanbevolen om wormen tijdens de assay over te brengen. - Tel elke dag het aantal dode wormen op elke technische replica-plaat en noteer dit aantal op een scoreblad. De scoring wordt handmatig uitgevoerd onder een dissectiemicroscoop op de werkbank bij kamertemperatuur. Actief bewegende wormen worden als levend gescoord en behoeven geen fysieke stimulatie. Voor wormen die geen spontane beweging vertonen, worden de wormen voorzichtig gestimuleerd door tweemaal met een platina draadje de posterieure lichaamsregio aan te raken. Het uitblijven van een reactie wordt geregistreerd als dood en de dode worm wordt na registratie van de plaat verwijderd. Een handmatige telmeter wordt aanbevolen om nauwkeurig tellen te garanderen. Om ervoor te zorgen dat alle wormen één keer worden geteld en niet herhaaldelijk, kan een transparant plastic vel met raster onder de plaat worden geplaatst, of kan er een raster op de bodem van de plaat worden getekend om de platen in rastersecties voor het tellen te verdelen.
OPMERKING: Plaats de wormen onmiddellijk na het scoren terug in de incubator. Houd de wormen ongeveer 24 uur in de incubator vóór de volgende scoring. - Controleer dagelijks de overleving van de wormen totdat alle dieren dood zijn of zijn gecensureerd volgens de vooraf gedefinieerde criteria. Verzamel de geregistreerde overlevingsgegevens en gebruik deze om overlevingscurves te genereren voor verdere analyse.
- Maak mediumplaten voor de oxidatieve stress-assay. Voeg paraquat-stockoplossing toe (0,5 M in ddH2O)2O, bewaard bij –20 °C) in het vloeibare NGM-medium (uit sectie 1.1.2) tot een eindconcentratie van 2,5, 5, 10 of 20 mM.
4. Data-analyse
- Note het aantal dode wormen op elke technische replica-plaat op elk tijdstip. Mortaliteitsgegevens worden genoteerd in een scoreblad dat is georganiseerd per tijdstip (uren of dagen na het aanvang van de stressconditie), experimentele groep (verschillende stammen of verschillende behandelcondities) en technische replica (plaat 1, 2, 3 of 4). Bij elk score-interval (per uur of per dag, afhankelijk van de assay) wordt het aantal dode wormen afzonderlijk voor elke plaat genoteerd, en wordt de cumulatieve mortaliteit bijgehouden tot de assay is voltooid.
- Voer de mortaliteitsgegevens van elk scoretijdstip in OASIS 2 (online application for survival analysis 2)44 voor het genereren van Kaplan–Meier-overlevingscurves en log-rank statistische analyse. Alternatief kan de mortaliteit worden berekend als het percentage dode wormen op individuele tijdstippen en tussen groepen worden vergeleken met behulp van een ongepaarde tweezijdige Student's t-test (voor twee groepen) of een eenweg ANOVA gevolgd door de multiple-comparisons test van Tukey (voor drie of meer groepen).
OPMERKING: Wormen die ruptuur of matricidaal uitkomen (bagging) worden op het moment van waarneming als dood gescoord om de algehele overleving te weerspiegelen. Geruptureerde wormen en bagged wormen zijn opgenomen in de gerapporteerde overlevingscurves in de representatieve resultaten hieronder. De aantallen gecensureerde wormen van verschillende condities zijn genoteerd in Supplementary Table 1. Wormen die van de assay-plaat ontsnappen, uitdrogen op de wand van de plaat of ontbreken tijdens het scoren, worden behandeld als gecensureerde observaties en uitgesloten van de daaropvolgende overlevingsanalyse. Dieren die een beperkte beweging vertonen maar reageren op een zachte aanraking, worden als levend gescoord. Wormen die eiafleggingsdefecten vertonen vóór de start van de assay, worden uitgesloten van de overlevingsanalyse. - Voer alle stress-assays uit in ten minste drie onafhankelijke biologische replica's die op verschillende dagen zijn uitgevoerd. Elke biologische replica bestaat uit vier technische replica-platen met wormen. Gegevens van de technische replica's binnen een biologische replica worden samengevoegd om één overlevingscurve te genereren. Onafhankelijke biologische replica's worden afzonderlijk geanalyseerd en gepresenteerd als individuele datasets in plaats van samengevoegd. Elke biologische replica wordt uitgevoerd met onafhankelijk bereide media en verse batches stress-inducerende verbindingen. De hierboven beschreven protocollen zijn stappen om één biologische replica voor elke stress-assay te genereren. Mannetjes worden uitgesloten en alleen hermaphrodieten worden in dit protocol opgenomen en geanalyseerd.
OPMERKING: De vochtigheid van de incubatoren in dit protocol wordt niet gecontroleerd, terwijl de incubatortemperatuur strikt wordt gecontroleerd op de experimentele temperatuur. De hier gerapporteerde experimenten werden niet onder geblindeerde condities uitgevoerd, en de experimentator was op de hoogte van het genotype en de behandelcondities tijdens het scoren. Blinding van genotype en behandelcondities wordt aanbevolen wanneer mogelijk om potentiële scorebias te minimaliseren.
Resultaten
Met gebruik van de hierboven beschreven protocollen hebben we eerst wild-type (WT) N2-wormen gebruikt om de overleving van wormen te onderzoeken bij een reeks toenemende doses van alle vier de stressoren: hitte-, ER-, mitochondriale en oxidatieve stress. Vervolgens hebben we een neuron-ablatiestam gebruikt om de rol van een interneuron RIC in stressbestendigheid te testen in vergelijking met WT-wormen.
Dosering van hittestress titreren en hittestressresistentie vergelijken in de RIC-ablatiestam
Bij de fysiologische temperatuur van 20 °C, WT-wormen hebben een gemiddelde levensduur van 20,67 dagen (Figuur 2A). Na de stappen van de hittestressassay zoals beschreven in sectie 3.1, hebben we de overleving van WT gemeten bij verhoogde temperaturen van 30, 35 en 37 °C naarmate de doses hittestress toenamen. De gegevens toonden aan dat WT-wormen een gemiddelde levensduur hebben van 3,11 dagen bij 30 °C (Figuur 2B); en WT-wormen hebben een gemiddelde overlevingstijd van 5,36 u bij 35 °C en 4,89 u bij 37 °C (Figuur 2C). Deze resultaten wezen op een significant verminderde overleving bij hogere temperaturen. Statistische analyses en P waarden worden gedetailleerd gepresenteerd in Aanvullende tabel 2 en figuurbijschriften. Deze gegevens bieden betrouwbare informatie voor onderzoekers om een optimale stresstemperatuur en tijdsschaal te kiezen bij het ontwerpen van een hittestress-assay. Onderzoekers kunnen 30 °C om de overleving van wormen gedurende meerdere dagen te onderzoeken terwijl men gebruikmaakt van 35 °C of 37 °C om binnen enkele uren tot een snellere beoordeling van de overleving van de wormen te komen.
Vervolgens hebben we 35 °C als hittestressconditie gebruikt om het effect van RIC-neuronablatie op de overleving te evalueren in vergelijking met WT-dieren. Deze temperatuur biedt een gemiddeld niveau van hittestress, waardoor de extreme ernst van 37 °C wordt vermeden terwijl er een robuustere respons optreedt dan bij 30 °C, wat resulteert in een volledige overlevingsanalyse binnen ongeveer 12 h.
RIC-neuronen zijn een paar octopaminerge interneuronen die zich bevinden in de kopregio van C. elegans9,10. De stam met geablateerde RIC-neuronen werd gegenereerd door expressie van het caspase-3-gen onder controle van de tbh-1-genpromotor en is eerder gebruikt45. Kort samengevat werd de tbh-1-promotor ingebouwd in de donorplasmiden mec-18p::caspase-3 (p12)::nz en mec-18p cz::caspase-3 (p17) om de mec-18-promotor te vervangen. Drie constructen, tbh-1p::caspase-3(p12)::nz (20 ng/µL), tbh-1p::cz::caspase-3(p17) (20 ng/µL) en tbh-1p::GFP (20 ng/µL, als marker voor RIC-neuronen om aan te geven of de RIC-neuronen geablateerd zijn), werden samen met de fluorescente co-injectiemarker myo-3p::GFP (5 ng/µL) geïnjecteerd in de wildtype N2-stam om genetische RIC-ablatiestammen te genereren. Drie onafhankelijk geïnjecteerde lijnen werden onderhouden als RIC-neuronablatiestam. De transgene lijnen werden onderhouden door de wormen met de fluorescente myo-3p::GFP-marker te selecteren. Resultaten van elke stressassay werden gevalideerd met twee of drie onafhankelijke lijnen. Succesvolle ablatie van de RIC-neuronen werd geverifieerd door de afwezigheid van tbh-1p::GFP-fluorescentie in de stam met geablateerde RIC-neuronen, terwijl GFP-expressie werd waargenomen in de RIC-neuronen van de tbh-1p::GFP-reportercontrolestam (Aanvullende Figuur 1).
Met behulp van de stappen van de hittestress-assay zoals beschreven in sectie 3.1, hebben we de overleving van zowel de WT- als de RIC-neuron-ablatiestammen onder hittestress van 35 °C onderzocht (Figuur 2D). Op basis van de stappen voor data-analyse zoals beschreven in sectie 4.1–4.3, toonden de resultaten aan dat er geen significant verschil werd gevonden tussen de RIC-neuron-ablatiestam en de wild-type N2 controlegroep onder hittestress van 35 °C (Figuur 2D).
Alle representatieve resultaten van hittestressassays werden verkregen met drie onafhankelijke biologische replica's die op verschillende dagen zijn uitgevoerd (Aanvullende figuur 2). Aantal dieren (n-waarde aangegeven in de bijschriften van de figuren) dat heeft bijgedragen De overlevingscurve in de representatieve resultaten en de aanvullende figuren is het samengevoegde aantal van de vier technische replica's in één biologische replica.
Titratie van de ER-stressdosering en vergelijking van ER-stressresistentie in de RIC-ablatiestam
Met behulp van de stappen van de ER-stressassay zoals beschreven in sectie 3.2, hebben we de overleving van WT gemeten bij 25, 50, 100 of 200 µg/mL tunicamycine als toenemende doses van ER-stress (Figuur 2E). Vergeleken met een fysiologisch niet-gestresste gemiddelde overleving van ongeveer 20 dagen (Figuur 2A), is de gemiddelde overleving van wild-type wormen 10,74 dagen bij 25 µg/mL, 9,13 dagen bij 50 µg/mL, 9,3 dagen bij 100 µg/mL en 8,93 dagen bij 200 µg/mL tunicamycine (Figuur 2E). De dosisverhoging van tunicamycine veranderde de overleving bij deze doses niet significant. Statistische analyses en P waarden worden in detail gepresenteerd in Aanvullende Tabel 2 en de bijschriften van de figuren. Deze gegevens bieden betrouwbare informatie voor onderzoekers om een optimale dosis tunicamycine te kiezen in een ER-stressassay.
Vervolgens gebruikten we 50 µg/mL tunicamycine, een gemiddelde dosis van de geteste hoeveelheden, als ER-stressconditie om het effect van RIC-neuronablatie op de overleving te evalueren in vergelijking met WT-dieren. Met behulp van de stappen voor de ER-stressanalyse zoals beschreven in sectie 3.2, hebben we de overleving van zowel WT- als RIC-neuron-geablateerde stammen onder ER-stress geïnduceerd door 50 µg/mL tunicamycine onderzocht (Figuur 2F). Met de stappen voor data-analyse uit sectie 4.1–4.3 vertoonde de overlevingscurve van de RIC-neuron-geablateerde stam een significante verschuiving naar rechts ten opzichte van de WT N2-controle, wat wijst op een verlengde overleving onder ER-stress. Dit resultaat suggereert dat ablatie van RIC-neuronen de resistentie tegen ER-stress verhoogt (Figuur 2F).
Alle representatieve resultaten van ER-stressassays werden uitgevoerd met drie onafhankelijke biologische replica's op verschillende dagen (Aanvullende Figuur 3). Het aantal dieren (n-waarde aangegeven in de figuurbeschrijvingen) dat bijdraagt aan de overlevingscurve in de representatieve resultaten en aanvullende figuren, is het gepoolde aantal van de vier technische replica's in één enkele biologische replica.
Titratie van de dosis mitochondriële stress en vergelijking van de resistentie tegen mitochondriële stress in de RIC-ablatiestam
Met behulp van de stappen van de assay voor mitochondriële stress zoals beschreven in sectie 3.3, hebben we de overleving van WT gemeten bij 5, 10, 20, 40 of 80 µg/mL antimycine A als toenemende doses van mitochondriële stress (Figuur 2G). De overlevingscurven van WT-wormen vertoonden significante veranderingen op een dosisafhankelijke manier. Vergeleken met een fysiologisch niet-gestreste gemiddelde overleving van ongeveer 20 dagen (Figuur 2A), is de gemiddelde overleving van wild-type wormen 4,96 dagen bij 5 µg/mL, 3,77 dagen bij 10 µg/mL, 2,68 dagen bij 20 µg/mL, 1,65 dagen bij 40 µg/mL en 1,4 dagen bij 80 µg/mL antimycine A (Figuur 2G). Statistische analyses en P -waarden worden gedetailleerd gepresenteerd in Aanvullende Tabel 2 en de bijschriften van de figuren. Deze gegevens bieden betrouwbare informatie voor onderzoekers om een optimale dosis antimycine A en tijdsschaal te kiezen bij het ontwerpen van een assay voor mitochondriële stress. Onderzoekers kunnen kiezen voor 5 µg/mL om de overleving van wormen over ongeveer 10 dagen te beoordelen, of hogere concentraties antimycine A gebruiken om overlevingsresultaten binnen enkele dagen te verkrijgen. Let op dat hogere concentraties de mortaliteit versnellen en lagere concentraties een geleidelijker afname in overleving veroorzaken, waardoor subtiele verschillen tussen stammen gemakkelijker kunnen worden onderscheiden.
Vervolgens gebruikten we 5 µg/mL antimycine A, wat bij de geteste doses een meer geleidelijke afname van de overleving veroorzaakte, als mitochondriale stressconditie om het effect van RIC-neuronablatie op de overleving te evalueren in vergelijking met WT-dieren. Met behulp van de stappen voor de mitochondriale stressassay die in sectie 3.3 worden beschreven, hebben we de overleving van zowel WT- als RIC-ablate stammen onder mitochondriale stress geïnduceerd door 5 µg/mL antimycine A onderzocht (Figuur 2H). Aan de hand van de stappen voor data-analyse beschreven in sectie 4.1–4.3 vertoonde de overlevingscurve van de RIC-neuronablate stam een significante verschuiving naar rechts ten opzichte van de WT N2-controle, wat wijst op een verlengde overleving onder mitochondriale stress. Dit resultaat suggereert dat ablatie van RIC-neuronen de resistentie tegen mitochondriale stress verhoogt (Figuur 2H).
Alle representatieve resultaten van mitochondriale stresstesten werden uitgevoerd met drie onafhankelijke biologische replica's op verschillende dagen (Aanvullende Figuur 4). Het aantal dieren (n-waarde aangegeven in de bijschriften van de figuren) dat bijdraagt aan de overlevingscurve in de representatieve resultaten en aanvullende figuren, is het totaal aantal van de vier technische replica's in één biologische replica.
Titreren van de dosis oxidatieve stress en vergelijken van de resistentie tegen oxidatieve stress in de RIC-ablatiestam
Met behulp van de stappen voor de assay voor oxidatieve stress zoals beschreven in sectie 3.4, hebben we de overleving van WT gemeten bij 2,5, 5, 10 of 20 mM paraquat als toenemende doses van oxidatieve stress (Figuur 2I). De overlevingscurven van WT-wormen vertoonden significante veranderingen op een dosisafhankelijke manier. In vergelijking met een fysiologisch niet-gestresste gemiddelde overleving van ongeveer 20 dagen (Figuur 2A), is de gemiddelde overleving van wild-type wormen 4,92 dagen bij 2,5 mM, 3,81 dagen bij 5 mM, 2,93 dagen bij 10 mM en 2,81 dagen bij 20 mM paraquat (Figuur 2I). Statistische analyses en P waarden worden in detail gepresenteerd in Aanvullende Tabel 2 en de bijschriften van de figuren. Deze gegevens bieden betrouwbare informatie voor onderzoekers om een optimale paraquatdosis en tijdschaal te kiezen bij het ontwerpen van een assay voor oxidatieve stress. Onderzoekers kunnen kiezen voor 2,5 mM om de overleving van wormen over ongeveer 10 dagen te beoordelen, of hogere paraquatconcentraties gebruiken om overlevingsresultaten binnen enkele dagen te verkrijgen. Let op dat hogere concentraties (10 mM en 20 mM) de mortaliteit versnellen, en dat gemiddelde en lagere concentraties (2,5 mM en 5 mM) een geleidelijker afname in overleving veroorzaken, waardoor subtiele verschillen tussen stammen gemakkelijker te onderscheiden zijn.
Vervolgens hebben we 5 mM paraquat, een tussenliggende dosis van de geteste doses, gebruikt als oxidatieve stressconditie om het effect van RIC-neuronablatie op de overleving te evalueren in vergelijking met WT-dieren. Met behulp van de stappen voor de oxidatieve stressassay beschreven in sectie 3.4, hebben we de overleving van zowel de WT- als de RIC-neuronablate stammen onder 5 mM paraquat-geïnduceerde oxidatieve stress onderzocht (Figuur 2J). Op basis van de stappen voor de data-analyse beschreven in sectie 4.1–4.3, lieten de resultaten zien dat er geen significant verschil werd gevonden tussen de RIC-neuronablate stam en de wild-type N2-controlegroep onder 5 mM paraquat-geïnduceerde oxidatieve stress (Figuur 2J).
Alle representatieve resultaten van de assays voor oxidatieve stress werden verkregen met drie onafhankelijke biologische replica's die op verschillende dagen zijn uitgevoerd (Aanvullende figuur 5). Aantal dieren (n-waarde wordt aangegeven in de bijschriften van de figuren) die bijdragen de overlevingscurve in de representatieve resultaten en aanvullende figuren is het gepoolde aantal van de vier technische replica's in één biologische replica.
Probleemoplossing
Een terugkerend probleem bij assays voor paraquat-geïnduceerde oxidatieve stress is dat wormen van de agarplaten ontsnappen, wat leidt tot verlies van dieren en een verminderd aantal wormen dat beschikbaar is voor analyse. Een barrière van palmitinezuur of een ander "hekje" kan aan de assayplaten worden toegevoegd om dit ontsnappingsgedrag gedeeltelijk te onderdrukken46,47, hoewel de verbetering bescheiden is en het probleem niet volledig elimineert. Er werd geen significant verschil waargenomen in de gezondheid en levensduur van C. elegans na behandeling met palmitinezuur48. De palmitinezuurbarrière fungeert als een averSIeve "omheining" op NGM-platen om te voorkomen dat C. elegans vlucht vanwege stress, uithongering of pathogenen. Om ontsnapping van wormen te minimaliseren, brengt u 30 µL van 10 mg/mL palmitinezuur in ethanol aan (voeg 0,5 g palmitinezuur toe aan 50 mL 100% EtOH) op de rand van de 35 mm assayplaat en draai de plaat voorzichtig om een continue ring te vormen. Zodra de ethanol is verdampt, fungeert de palmitinezuur ring als een fysieke en chemische barrière om ontsnapping van wormen te verminderen. Wormen die sterven terwijl ze in contact zijn met de palmitinezuurring worden gecensureerd en uitgesloten van de overlevinganalyse.
WAARSCHUWING: Palmitinezuur en de oplossing ervan moeten worden gehanteerd met passende laboratorium-PBM, waaronder handschoenen, een laboratoriumjas en oogbescherming, en er moet zorg worden betracht om contact met de huid en ogen te vermijden.
DATABESCHIKBAARHEID
De overlevingsgegevens ten grondslag aan Figuur 2 en de aanvullende figuren, inclusief gegevens voor alle biologische replica's en statistische resultaten, zijn te vinden in Aanvullende Figuur 1–5, Aanvullende Tabel 1–2 en Aanvullend Bestand 1.
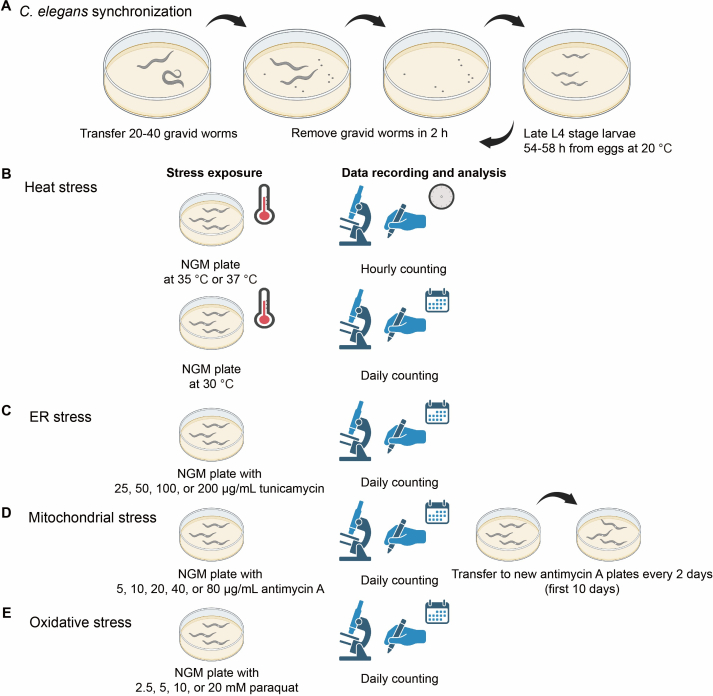
Figuur 1: Workflow van stressassays. (A) Gesynchroniseerde wormen worden verkregen door eieren te verzamelen die binnen een periode van 2 u door gravide wormen zijn gelegd. Gesynchroniseerde wormen worden gebruikt voor alle stressassays en worden in het late L4-stadium overgebracht naar stressplaten of -condities na 54-58 u ontwikkeling vanaf eieren bij 20 °C. (B) Bij de hittestressassay worden gesynchroniseerde wormen overgebracht naar NGM-platen in een incubator van 35 °C of 37 °C, en worden dode wormen elk uur geteld. Voor de hittestressassay in een incubator van 30 °C worden dode wormen dagelijks geteld. (C) Bij de ER-stressassay worden gesynchroniseerde wormen overgebracht naar NGM-platen die 25, 50, 100 of 200 µg/mL tunicamycine bevatten. Dode wormen worden dagelijks geteld. (D) Bij de mitochondriële stressassay worden gesynchroniseerde wormen overgebracht naar NGM-platen die 5, 10, 20, 40 of 80 µg/mL antimycine A bevatten, en wordt de overleving dagelijks beoordeeld. Om interferentie door nakomelingen te voorkomen, worden wormen tijdens de eerste 10 dagen van de assay elke twee dagen overgebracht naar verse platen met antimycine A. (E) Bij de oxidatieve stressassay worden gesynchroniseerde wormen overgebracht naar NGM-platen die 2,5, 5, 10 of 20 mM paraquat bevatten, en wordt de overleving dagelijks beoordeeld. Stressresistentie wordt geëvalueerd door het vergelijken van Kaplan-Meier-overlevingscurven die uit elke assay zijn gegenereerd. Klik hier om een grotere versie van deze figuur te bekijken.
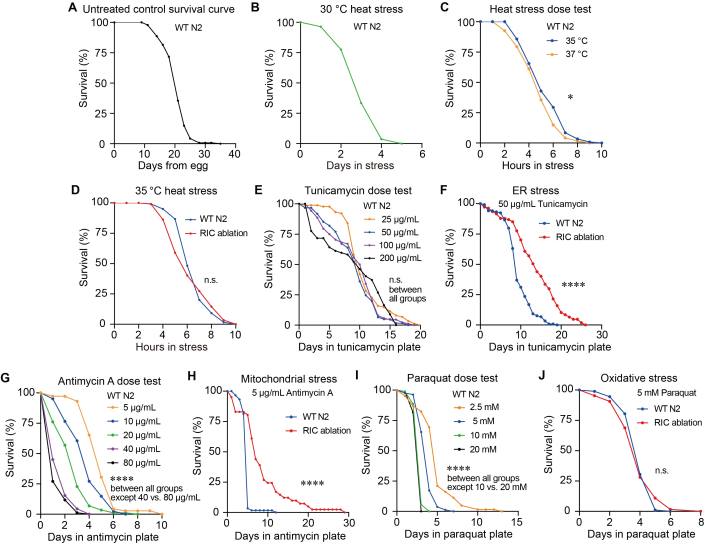
Figuur 2: Titratie van de dosis hitte-, ER-, mitochondriale en oxidatieve stress en vergelijking van de stressresistentie in de RIC-neuron-geablateerde stam. (A) Representatieve Kaplan-Meier overlevingscurve van de WT N2-stam onder niet-stressomstandigheden (n = 141, gemiddelde overleving = 20,67 dagen). (B) Representatieve Kaplan-Meier overlevingscurve van de WT N2-stam onder hittestress van 30 °C (n = 111, gemiddelde overleving = 3,11 dagen). (C) Representatieve Kaplan-Meier overlevingscurve van de WT N2-stam onder hittestress van 35 °C en 37 °C (n = 119, 121); log-rank test, P = 0,0244, * geeft P < 0,05 aan. (D) Representatieve Kaplan-Meier overlevingscurve van de WT N2- en de RIC-neuron-geablateerde stam onder hittestress van 35 °C (n = 117, 120); log-rank test, P = 0,4972, n.s. geeft aan dat er geen significant verschil is. WT N2 werd als controle gebruikt. (E) Dosis-responsoverlevingscurves van de WT N2-stam bij toenemende concentraties van tunicamycinebehandeling (n = 88, 61, 88, 67); log-rank test, P = 0,6472 (25 µg/mL v.s. 100 µg/mL), P = 0,1473 (25 µg/mL v.s. 50 µg/mL), P = 0,6581 (50 µg/mL v.s. 200 µg/mL), P = 1 (25 µg/mL v.s. 200 µg/mL; 50 µg/mL v.s. 100 µg/mL; 100 µg/mL v.s. 200 µg/mL), n.s. geeft aan dat er geen significant verschil is. (F) Representatieve Kaplan-Meier overlevingscurve van de WT N2- en de RIC neuron-geablateerde stam onder ER-stress geïnduceerd door 50 µg/mL tunicamycine (n = 119, 107); log-rank test, **** geeft P < 0,0001 aan. (G) Representatieve Kaplan-Meier overlevingscurves van de WT N2-stam behandeld met toenemende concentraties antimycine A (n = 72, 81, 88, 91, 85); log-rank test, P = 0,000038 (5 µg/mL v.s. 10 µg/mL), P = 0,00002 (10 µg/mL v.s. 20 µg/mL), P = 1,60 × 10⁻8 (20 µg/mL v.s. 40 µg/mL), P < 0,0001 (5 µg/mL v.s. 20 µg/mL; 5 µg/mL v.s. 40 µg/mL; 5 µg/mL v.s. 80 µg/mL; 10 µg/mL v.s. 40 µg/mL; 10 µg/mL v.s. 80 µg/mL; of 20 µg/mL v.s. 80 µg/mL), P = 0,189 (40 µg/mL v.s. 80 µg/mL), **** geeft P < 0,0001 aan. (H) Representatieve Kaplan-Meier overlevingscurve van de WT N2- en de RIC-neuron-geablateerde stam onder mitochondriale stress geïnduceerd door 5 µg/mL antimycine A (n = 59, 41); log-rank test, P = 3,2 × 10⁻9, **** geeft P < 0,0001 aan. (I) Representatieve Kaplan-Meier overlevingscurves van de WT N2-stam bij verschillende doses paraquat (n = 62, 81, 88, 93); log-rank test, P = 1,80 × 10⁻7 (2,5 mM v.s. 5 mM), P < 0,0001 (2,5 mM v.s. 10 mM; 2,5 mM v.s. 20 mM; 5 mM v.s. 10 mM; 5 mM v.s. 20 mM), P = 0,1445 (10 mM v.s. 20 mM), **** geeft P < 0,0001 aan. (J) Representatieve Kaplan-Meier overlevingscurves van de WT N2- en de RIC-neuron-geablateerde stam onder oxidatieve stress geïnduceerd door 5 mM paraquat (n = 92, 64); log-rank test, P = 0,9817, n.s. geeft aan dat er geen significant verschil is. Alle experimenten zijn uitgevoerd met drie onafhankelijke biologische herhalingen. In deze figuur worden representatieve resultaten van één biologische herhaling getoond. Elke biologische herhaling bestaat uit vier technische herhalingsplaten met wormen. Het aantal dieren (n) dat bijdraagt aan de overlevingscurve in deze figuur is het gepoolde aantal van de vier technische herhalingen in één enkele biologische herhaling. Onafhankelijke biologische herhalingen werden apart geanalyseerd in plaats van gepoold en zijn gepresenteerd als individuele datasets in Aanvullende Figuur 2–5. Significantie werd beoordeeld met een log-rank test door overlevingsdistributies te vergelijken. Gedetailleerde statistische P-waarden, gemiddelde overleving en S. E. tussen technische herhalingen zijn opgenomen in Aanvullende Tabel 2. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende Figuur 1: Afwezigheid van tbh-1p::GFP-fluorescentie in de stam met geablateerde RIC-neuronen, terwijl GFP-expressie werd waargenomen in de RIC-neuronen van de tbh-1p::GFP-reporter-controllestam. (A) Fluorescentiebeelden van de stam met geablateerde RIC-neuronen tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP en een tbh-1p::GFP-reporter-controllestam OH16150 tbh-1p::GFP; tdc-1p::mCherry. Wormen in het late L4-stadium zijn afgebeeld met 488 nm excitatie met een belichtingstijd van 800 ms voor het GFP-kanaal en een belichtingstijd van 176 ms voor het bright-field-kanaal. Gele pijlpuntjes geven de locatie van de RIC-neuronen aan in de controle tbh-1p::GFP-reporterstam of de verwachte locatie van de RIC-neuronen, welke afwezig is in de stam met geablateerde RIC-neuronen. tbh-1p::GFP-signaal werd niet gedetecteerd op de locatie van de RIC-neuronen in de stam met geablateerde RIC-neuronen, terwijl tbh-1p::GFP-signaal werd waargenomen in de RIC-neuronen van de tbh-1p::GFP-reporter-controllestam OH16150. De fluorescentie van de lichaamswandspieren in de stam met geablateerde RIC-neuronen is afkomstig van myo-3p::GFP, een co-injectiemarker. (A) n = 14 voor OH16150; n = 20 voor de stam met geablateerde RIC-neuronen. (B, C) Representatieve resultaten van twee andere biologische replica's. Wormen in het late L4-stadium zijn afgebeeld met 488 nm excitatie met een belichtingstijd van 1007 ms (B) of 1998 ms (C) voor het GFP-kanaal en een belichtingstijd van 176 ms (B en C) voor het bright-field-kanaal. (B) n = 8 voor OH16150; n = 17 voor de stam met geablateerde RIC-neuronen. (C) n = 14 voor OH16150; n = 13 voor de stam met geablateerde RIC -neuronen. Klik hier om dit bestand te downloaden.
Aanvullende figuur 2: Biologische replica's van overlevingscurves onder niet-stressomstandigheden of hittestress. (A, B) Kaplan-Meier overlevingscurves van twee onafhankelijke biologische replica's onder niet-stressomstandigheden. (A) n = 123, gemiddelde overleving = 20,52 dagen; (B) n = 130, gemiddelde overleving = 22,74 dagen. (C, D) Kaplan-Meier overlevingscurves van de WT N2-stam onder hittestress van 30 °C. De gegevens zijn afkomstig van twee onafhankelijke biologische replica's. (C) n = 130, gemiddelde overleving = 3,72 dagen. (D) n = 98, gemiddelde overleving = 3,77 dagen. (E, F) Kaplan-Meier overlevingscurves onder hittestressomstandigheden van 35 °C of 37 °C. De gegevens zijn afkomstig van twee onafhankelijke biologische replica's. (E) n = 118, 121; log-rank test, P = 0,0409, * geeft P < 0,05 aan, (F) n = 122, 120; log-rank test, P = 0,0251, * geeft P < 0,05 aan. (G, H) Kaplan-Meier overlevingscurves van WT N2 en RIC-neuron-geablateerde stammen onder hittestressomstandigheden van 35 °C. De gegevens zijn afkomstig van twee onafhankelijke biologische replica's. (G) n = 79, 76; log-rank test, P = 0,2217, n.s. geeft aan dat er geen significant verschil is. (H) n = 77, 81; log-rank test, P = 0,1881, n.s. geeft aan dat er geen significant verschil is. Significantie werd beoordeeld met behulp van een log-rank test waarbij overlevingsdistributies werden vergeleken. Gedetailleerde statistische P-waarden, gemiddelde overleving en S. E. tussen technische replica's zijn opgenomen in Aanvullende Tabel 2. Klik hier om dit bestand te downloaden.
Aanvullende figuur 3: Biologische replica's van overlevingscurves onder ER-stresscondities. (A, B) Kaplan-Meier overlevingscurves van de WT N2-stam bij verschillende concentraties tunicamycinebehandeling. Gegevens zijn afkomstig van twee onafhankelijke biologische replica's. (A) n = 110, 102, 100, 96; (B) n = 88, 77, 75, 69. Statistische P-waarden tussen verschillende groepen (A en B) zijn aangegeven in Aanvullende tabel 2. (C, D) Kaplan-Meier overlevingscurves van de WT N2-stam en de RIC-neuron-geablateerde stam onder 50 µg/mL tunicamycine-geïnduceerde ER-stresscondities. Gegevens zijn afkomstig van twee onafhankelijke biologische replica's. (C) n = 104, 55; log-rank test, P = 0,012, * geeft P < 0,05 aan, (D) n = 85, 109; log-rank test, P = 0,0001, *** geeft P < 0,001 aan. Significantie werd beoordeeld met een log-rank test door overlevingsdistributies te vergelijken. Gedetailleerde statistische P-waarden, gemiddelde overleving en S. E. tussen technische replica's zijn opgenomen in Aanvullende tabel 2. Klik hier om dit bestand te downloaden.
Aanvullende figuur 4: Biologische replica's van overlevingscurves onder omstandigheden van mitochondriële stress. (A, B) Kaplan-Meier overlevingscurves van de WT N2-stam bij verschillende concentraties van antimycine A-behandeling. De gegevens zijn afkomstig van twee onafhankelijke biologische replica's. (A) n = 71, 80, 81, 88, 90. (B) n=71, 85, 83, 88, 87. Statistische P-waarden tussen verschillende groepen (A en B) zijn aangegeven in Aanvullende Tabel 2. (C, D) Kaplan-Meier overlevingscurves van de WT N2-stam en de RIC-neuron-geablateerde stam onder antimycine A-geïnduceerde mitochondriële stress. De gegevens zijn afkomstig van twee onafhankelijke biologische replica's. (C) n = 105, 78; log-rank test, P = 0.000004, **** geeft P < 0.0001 aan. (D) n = 89, 73; log-rank test, **** geeft P < 0.0001 aan. De significantie werd beoordeeld met een log-rank test waarbij overlevingsdistributies werden vergeleken. Gedetailleerde statistische P-waarden, gemiddelde overleving en S. E. tussen technische replica's zijn opgenomen in Aanvullende Tabel 2. Klik hier om dit bestand te downloaden.
Aanvullende figuur 5: Biologische replica's van overlevingscurven onder oxidatieve stressomstandigheden. (A, B) Kaplan-Meier-overlevingscurven van de WT N2-stam bij verschillende concentraties paraquatbehandeling. De gegevens zijn afkomstig van twee onafhankelijke biologische replica's. (A) n = 38, 63, 60, 31. (B) n = 55, 77, 86, 107. Statistische P-waarden tussen verschillende groepen (A en B) zijn aangegeven in Aanvullende Tabel 2. (C, D) Kaplan-Meier-overlevingscurven van de WT N2-stam en de RIC-neuron-geablateerde stam onder oxidatieve stressomstandigheden geïnduceerd door 5 mM paraquat. De gegevens zijn afkomstig van twee onafhankelijke biologische replica's. (C) n = 87, 82; log-rank test, P = 0,2629, n.s. geeft aan dat er geen significant verschil is. (D) n = 116, 118; log-rank test, P = 0,1184, n.s. geeft aan dat er geen significant verschil is. De significantie is beoordeeld met behulp van een log-rank test waarbij overlevingsverdelingen zijn vergeleken. Gedetailleerde statistische P-waarden, gemiddelde overleving en S. E. tussen technische replica's zijn opgenomen in Aanvullende Tabel 2. Klik hier om dit bestand te downloaden.
Aanvullende tabel 1: Samenvatting van het aantal wormen opgenomen in alle overlevingscurves. De tabel vat het initiële aantal wormen en de aantallen gebroken, in zakjes geplaatste en gecensureerde wormen samen. Klik hier om dit bestand te downloaden.
Aanvullende Tabel 2: Gedetailleerde statistische analyses van alle overlevingcurves, inclusief P-waarden, gemiddelde overleving en S. E. Klik hier om dit bestand te downloaden.
Aanvullend bestand 1: Gegevens ter ondersteuning van de bevindingen van deze studie.
Bevat de verificatie van de succesvolle ablatie van de RIC-neuronen en de resultaten van alle biologische replica's die ten grondslag liggen aan de data gepresenteerd in de hoofdfiguren. Klik hier om dit bestand te downloaden.
Discussie
Hier hebben we gestandaardiseerde stappen beschreven voor reproduceerbare stressassays onder hitte-, ER-, mitochondriale en oxidatieve stress in C. elegans (Figuur 1). We hebben een reeks toenemende doses van alle vier de stressfactoren onderzocht op de overleving van WT-wormen (Figuur 2). We hebben ook een voorbeeld gepresenteerd van het onderzoeken van de rol van een interneuron bij stressresistentie tegen alle vier de stressfactoren met behulp van een neuron-ablatiestam (Figuur 2).
Om het hier gepresenteerde stressassay-protocol succesvol toe te passen, moeten er tijdens het proces enkele belangrijke overwegingen in acht worden genomen. Vanwege lab-tot-lab variabiliteit door verschillen in onder andere agarpoeder, medium, omgevingstemperatuur en luchtvochtigheid, wordt aanbevolen om de concentraties van elke stressfactor of stress-inducerende verbinding te titreren volgens onze titratie en de stappen die worden beschreven in de secties Protocol en Resultaten. Een geschikte stressconditie moet een reproduceerbare, tussenliggende overlevingsrespons opwekken bij wildtype controlewormen, waardoor er voldoende dynamisch bereik is om zowel een toename als een afname van de stressresistentie te detecteren. Condities die leiden tot bijna volledige overleving of bijna volledige letaliteit moeten worden vermeden. Vervolgens is het essentieel om ervoor te zorgen dat de wormen voor alle biologische en technische replica's zijn gesynchroniseerd naar hetzelfde ontwikkelingsstadium. Wormsynchronisatie kan worden bereikt door de procedure te volgen die wordt beschreven in sectie 2.1–2.3. Synchronisatie in het late L4-stadium wordt aanbevolen. Het starten van stressassays in het L4-stadium is een gevestigde praktijk in het onderzoek naar de stressrespons van C. elegans, en talloze studies hebben gesynchroniseerde L4-dieren gebruikt voor assays naar oxidatieve42, hitte 40,43 en andere stressresistentie35. Starten in het L4-stadium waarborgt ontwikkelingssynchronisatie terwijl variabiliteit door verschillen in volwassen leeftijd en reproductieve status wordt geminimaliseerd, inclusief het begin van de eiproductie en embryo-retentie, die beide de metingen van stressresistentie kunnen beïnvloeden12,37,38,40. Omdat alle experimentele groepen in onze studie gesynchroniseerd waren en identiek werden behandeld, biedt deze aanpak een consistente en passende basis voor het vergelijken van stressresistentie. Ten slotte, indien wormen vóór de start van de assay zijn uitgehongerd of gestrest, moeten hun nakomelingen gedurende enkele generaties onder gevoede, niet-gestresste condities worden hersteld voordat ze als gravide wormen worden gebruikt om gesynchroniseerde nakomelingen voor de stressassays te genereren.
Inter-experimentele variabiliteit tussen onafhankelijke biologische replicaten kan voortkomen uit verschillen in de bereiding en bewaring van platen, waaronder de bewaartijd van platen met stress-inducerende verbindingen bij 4 °C en het tijdstip van het uitzaaien van OP50-bacteriën. Om de reproduceerbaarheid tussen experimenten die op verschillende dagen zijn uitgevoerd te verbeteren, moeten kritische stappen bij de bereiding van platen worden gestandaardiseerd volgens het beschreven protocol voor het maken van NGM-platen in sectie 1.1, tunicamycine-geïnduceerde ER-stressplaten in sectie 3.2.1, antimycine A-geïnduceerde mitochondriale stressplaten in sectie 3.3.1 en paraquat-geïnduceerde oxidatieve stressplaten in sectie 3.4.1. In het bijzonder moeten agaplaatjes ongeveer 24 u bij kamertemperatuur drogen na het gieten, waarna ze met OP50 worden geënt zodra de agar volledig is gestold. De geënte NGM-platen met OP50 moeten nogmaals 24 u bij kamertemperatuur drogen voordat ze bij 4 °C worden bewaard. De optimale droogtijd kan variëren afhankelijk van het gebruik van geventileerde of niet-geventileerde platen en lokale omgevingscondities, zoals temperatuur en luchtvochtigheid. Daarom moet elk laboratorium deze stap optimaliseren voor de eigen condities en een consistente droogtijd handhaven voor alle onafhankelijke biologische replicaten om de reproduceerbaarheid te waarborgen. Stressassay-platen moeten binnen één week na bereiding worden gebruikt om degradatie van stress-inducerende verbindingen en excessieve bacteriële groei te minimaliseren, aangezien beide de consistentie van de assay kunnen beïnvloeden.
Dit protocol toonde ook een voorbeeld van het onderzoeken van de rol van een interneuron bij de stressrespons op alle vier de stressfactoren met behulp van een neuron-ablatiestam (Figuur 2). De promotor van een gen dat specifiek in een neuron tot expressie komt, kan worden gebruikt om de expressie van caspase-3 aan te sturen en het doelneuron te ableren. Hier maakten we gebruik van de tbh-1 promotor, die genexpressie specifiek in RIC-neuronen aanstuurt, voor de ablatie van RIC-neuronen. De tbh-1 promotor is uitgebreid gevalideerd voor genetische manipulatie gericht op RIC en wordt routinematig gebruikt voor cel-specifieke expressie, rescue, calcium-imaging en neuronale silencing45,49,50. In overeenstemming met de gerapporteerde karakterisering van tbh-1, observeerden we dat de expressie van tbh-1p::GFP beperkt bleef tot de RIC-neuronen en detecteerden we geen fluorescentie in andere weefsels (Aanvullende Figuur 1). We hebben de nestgrootte of de morfologie van de kiemlijn in de stam met geablate RIC-neuronen niet specifiek onderzocht; we observeerden echter geen duidelijke fysiologische defecten in de stam met geablate RIC-neuronen. Er is gerapporteerd dat de tbh-1 reporter aanvullende expressie vertoont in somatische gonadale schedecellen, wat somatische cellen van het voortplantingssysteem zijn51,52. Hoewel we de mogelijkheid van een lage expressie buiten de RIC-neuronen niet volledig kunnen uitsluiten, achten we het onwaarschijnlijk dat niet-RIC-expressie van tbh-1 verantwoordelijk is voor de verhoogde stressresistentie die werd waargenomen bij de dieren met geablate RIC-neuronen. Hoewel deze methode goed is vastgesteld49,50, wordt deze beperkt door mogelijke expressie in cellen buiten het doelneuron. Andere methodieken om de rol van een neuron te bevestigen zijn nodig, bijvoorbeeld het monitoren van de neuronale activiteit als reactie op stressfactoren, of het evalueren van de rol van neurotransmitters die door dit neuron worden afgegeven in stressassays.
C. elegans overlevingsassays zijn krachtige instrumenten voor het meten van stressbestendigheid vanwege de relatief korte levensduur van de wormen (ongeveer 20 tot 30 dagen, Figuur 2) en de snelle mortaliteit die wordt geïnduceerd door meerdere stressoren, wat doorgaans in uren tot dagen plaatsvindt (Figuur 2). Een beperking van overlevingsassays is echter dat ze gebruikmaken van een binair levend/dood eindpunt en daarom de progressieve fysiologische achteruitgang die optreedt tijdens blootstelling aan stress niet vastleggen. Complementaire assays, zoals thrashing-assays of geautomatiseerde locomotie- (snelheids)metingen uitgevoerd op meerdere tijdspunten, kunnen aanvullende informatie verschaffen over het geleidelijke verlies van neuromusculaire functie tijdens stress. Een andere beperking is dat de dood wordt bepaald door de afwezigheid van een reactie op zachte fysieke stimulatie, wat de levensvatbaarheid bij dieren met ernstig beperkte locomotie kan onderschatten. Bovendien introduceert handmatige scoring waarnemer-afhankelijke variabiliteit en potentiële bias. Om deze effecten te minimaliseren, moet alle scoring binnen een onafhankelijk biologisch replica worden uitgevoerd door dezelfde onderzoeker, die geblindeerd moet zijn voor genotype en experimentele condities. Consistente scoringscondities, inclusief het gebruik van dezelfde microscoopvergroting en verlichtingsinstellingen op elk tijdstip, zijn ook belangrijk om variabiliteit tussen platen en over experimenten heen te verminderen. In de representatieve resultaten presenteerden we een voorbeeld waarin de stam met geablate RIC-neuronen een verhoogde stressbestendigheid vertoonde tegen ER- en mitochondriële stress, maar niet tegen hitte- en oxidatieve stress, vergeleken met wild-type wormen (Figuur 2). Een verschil in overleving onder twee van de vier stressoren stelt op zichzelf geen pathway-specifieke rol voor het neuron vast; de biologische conclusie in dit manuscript wordt aangeboden als een demonstratie van de methode en de observatie, eerder dan als een mechanistische bewering.
Naast de hier beschreven stress-overlevingstesten zijn er verschillende geautomatiseerde platforms ontwikkeld om de overleving van C. elegans te meten. Geautomatiseerde scoring verhoogt de doorvoer aanzienlijk, maakt continue of hoogfrequente monitoring mogelijk en vermindert de waarnemer-afhankelijke bias en de arbeid die gepaard gaat met handmatige scoring53,54,55. Deze systemen zijn bijzonder voordelig voor grootschalige genetische of chemische screens. De meeste geautomatiseerde methoden leiden de dood echter af uit het stoppen van de beweging, wat kan leiden tot de verkeerde classificatie van wormen die in rust zijn of een ernstig beperkte voortbeweging vertonen onder stress, afhankelijk van het imaging-algoritme en de detectiedrempel. Geautomatiseerde detectie kan ook worden beïnvloed door omgevingsfactoren, waaronder temperatuur, condensatie, schimmel- of bacteriële contaminatie en variaties in de kweekcondities, die allemaal de detectie van wormen kunnen verstoren en de overlevingsmetingen kunnen beïnvloeden. In tegenstelling hiermee stelt handmatige scoring de experimentator in staat om abnormale fenotypes te identificeren, zoals bagging, intern uitkomen of gescheurde dieren, die specifieke scoring- of censureringscriteria kunnen vereisen. Hoewel handmatige scoring arbeidsintensiever is en onderhevig is aan waarnemer-gerelateerde variabiliteit, kunnen deze beperkingen worden geminimaliseerd door geblindeerde scoring, gestandaardiseerde scoringcriteria en consistente scoring door dezelfde onderzoeker. Bijgevolg hebben handmatige en geautomatiseerde overlevingstesten elk hun eigen specifieke voordelen en beperkingen, en de keuze van de methode moet worden geleid door de experimentele doelstellingen, de vereiste doorvoer en de aard van het stresparadigma.
Samen bieden de hier beschreven methoden een gestandaardiseerd en reproduceerbaar kader voor het evalueren van de reacties van C. elegans op meerdere omgevingsstressoren, waaronder hitte, mitochondriële stress, ER-stress en oxidatieve stress. Het beoordelen van de resistentie tegen diverse stressoren is essentieel, omdat genetische of fysiologische verstoringen de resistentie tegen één type stress kunnen verhogen terwijl de gevoeligheid voor een andere stressor toeneemt, waardoor zowel stressor-specifieke als gedeelde mechanismen van stressadaptatie worden onthuld. Deze assays maken kwantitatieve vergelijkingen van stressresistentie mogelijk tussen verschillende genotypen en experimentele condities en kunnen gemakkelijk worden toegepast om de rollen van genen, neuronen en metabole paden bij het handhaven van stressresistentie en fysiologische homeostase te onderzoeken. In bredere zin bieden deze methoden een robuust platform voor het identificeren van mechanismen die de gezondheid en overleving van het organisme onder ongunstige omgevingscondities bevorderen.
Openbaarmakingen
De auteurs hebben geen belangenconflicten om te vermelden.
Dankbetuigingen
Het onderzoek dat in deze publicatie wordt beschreven, werd gefinancierd door het Kansas Idea Network of Biomedical Research Excellence (K-INBRE, P20 GM103418), het Center of Biomedical Research Excellence (COBRE, P20 GM113109) en het Johnson Cancer Research Center aan de Kansas State University (Cancer Research Expansion Award) aan S.H.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Tunicamycine | Sigma-Aldrich | T7765 | ER-stressinductor |
| Antimycine A | Sigma-Aldrich | A8674 | Mitochondriële stress-induceerder |
| Methylviologendichloridehydraat (paraquat) | Sigma-Aldrich | 856177 | Induceerder van oxidatieve stress |
| Palmitinezuur | MP Biomedicals, LLC | 100905 | Onderdrukken C. elegans ontsnappen gedrag |
| Cholesterol | MP Biomedicals, LLC | 101382 | Voor NGM |
| Calciumchloride | Thermo Fisher Scientific Inc. | C79-500 | Voor NGM |
| Watervrije magnesiumsulfaat | Mallinckrodt Pharmaceuticals plc | 6070 | Voor NGM |
| Agar | Apex Chemicals Co., Ltd | 20-273 | Voor NGM |
| Pepton | Apex Chemicals Co., Ltd | 20-260 | Voor NGM |
| Kaliumfosfaat monobasisch | Thermo Fisher Scientific Inc. | P285-3 | Voor NGM |
| Natriumchloride | Thermo Fisher Scientific Inc. | S640-3 | Voor NGM |
| Kaliumfosfaat dibasisch | Allied Chemical, General Chemical Division | Code 2131 | Voor NGM |
| Petrischalen (35 mm) | Genesee Scientific, LLC | 32-103 | Stressassayplaten |
| Petrischalen (60 mm) | Genesee Scientific, LLC | 32-105 | Onderhouden C. elegans |
| mec-18p cz::caspase-3 (p17) | Addgene | TU#814 | |
| mec-18p::caspase-3 (p12)::nz | Addgene | TU#813 | |
| New Brunswick Scientific (Eppendorf) C24KC gekoelde incubator-schudder | Eppendorf / New Brunswick Scientific | C24KC | 37 °C incubator |
| DigiTherm® verwarmings- en koelincubator van 38 liter | Tritech Research Inc. | DT2-MP-47L | 35 °C incubator |
| Fisher Scientific Isotemp lage temperatuur incubator | Fisher Scientific | 146E | 30 °C incubator |
| SHELab SRI20P gekoelde incubator | Sheldon Manufacturing Inc. | SRI20P | 20 °C incubator |
| Leica M165 FC Research Stereo Microscope | Leica Microsystems | M165 FC | Microscoop voor beeldvorming |
| ACCU-SCOPE 3075-DIA zoom-stereomicroscoop | ACCU-SCOPE Inc. | 3075-DIA | Microscoop voor het hanteren en scoren van wormen |
| Microsoft Excel 2019 | Microsoft Corporation | Plotten van ruwe gegevens | |
| GraphPad Prism 8.0.2 | GraphPad Software Inc. | Datavisualisatie | |
| OASIS 2 | POSTECH, PMID: 27528229 | Statistische analyse | |
| BioRender | Science Suite Inc. | Schematische weergave | |
| ImageJ | National Institutes of Health (NIH) | Beeldbewerking | |
| Adobe Illustrator 2021 | Adobe Inc. | Samenstelling van figuren indeling | |
| wildtype | Caenorhabditis Genetics Center, CGC | N2 | |
| tbh-1p::caspase-3(p12)::nz; tbh-1p::cz::caspase-3(p17); tbh-1p::GFP; myo-3p::GFP | zelfgemaakt | RIC-ablatie | |
| nIs107 [tbh-1::GFP] III. zfIs10 [tdc-1::mCherry] IV. RIC-neuronen zijn gemarkeerd met zowel GFP als mCherry | Caenorhabditis Genetics Center, CGC | OH16150 |
Referenties
- Morimoto RI, Santoro MG. Stress-inducible responses and heat shock proteins: new pharmacologic targets for cytoprotection. Nat Biotechnol. 1998;16(9):833-838.
- Hetz C, Chevet E, Oakes SA. Proteostasis control by the unfolded protein response. Nat Cell Biol. 2015;17(7):829-838.
- Blackwell TK, et al. SKN-1/Nrf, stress responses, and aging in Caenorhabditis elegans. Free Radic Biol Med. 2015;88(Pt B):290-301.
- Lamech LT, Haynes CM. The unpredictability of prolonged activation of stress response pathways. J Cell Biol. 2015;209(6):781-787.
- Balch WE, Morimoto RI, Dillin A, Kelly JW. Adapting proteostasis for disease intervention. Science. 2008;319(5865):916-919.
- Powers ET, et al. Biological and chemical approaches to diseases of proteostasis deficiency. Annu Rev Biochem. 2009;78:959-991.
- Soo SK, et al. Biological resilience and aging: activation of stress response pathways contributes to lifespan extension. Ageing Res Rev. 2023;88:101941.
- Ma Z, et al. The integrated stress response protects against ER stress but is not required for altered translation and lifespan from dietary restriction in Caenorhabditis elegans. Front Cell Dev Biol. 2023;11:1263344.
- Horikawa M, Sakamoto K. Fatty-acid metabolism is involved in stress-resistance mechanisms of Caenorhabditis elegans. Biochem Biophys Res Commun. 2009;390(4):1402-1407.
- Prahlad V, Cornelius T, Morimoto RI. Regulation of the cellular heat shock response in Caenorhabditis elegans by thermosensory neurons. Science. 2008;320(5877):811-814.
- Prahlad V, Morimoto RI. Neuronal circuitry regulates the response of Caenorhabditis elegans to misfolded proteins. Proc Natl Acad Sci U S A. 2011;108(34):14204-14209.
- Taylor RC, Dillin A. XBP-1 is a cell-nonautonomous regulator of stress resistance and longevity. Cell. 2013;153(7):1435-1447.
- Ozbey NP, et al. Tyramine acts downstream of neuronal XBP-1s to coordinate inter-tissue UPR(ER) activation and behavior in C. elegans. Dev Cell. 2020;55(6):754-770.e6.
- Durieux J, Wolff S, Dillin A. The cell-non-autonomous nature of electron transport chain-mediated longevity. Cell. 2011;144(1):79-91.
- Berendzen KM, et al. Neuroendocrine coordination of mitochondrial stress signaling and proteostasis. Cell. 2016;166(6):1553-1563.e10.
- Shaposhnikov M, et al. Lifespan and stress resistance in Drosophila with overexpressed DNA repair genes. Sci Rep. 2015;5:15299.
- Jia J, et al. A pair of dopamine neurons mediate chronic stress signals to induce learning deficit in Drosophila melanogaster. Proc Natl Acad Sci U S A. 2021;118(42):e2023674118.
- Solovev I, et al. Neuron-specific overexpression of core clock genes improves stress-resistance and extends lifespan of Drosophila melanogaster. Exp Gerontol. 2019;117:61-71.
- Shuai Y, Zhang Y, Gao L, Zhong Y. Stress resistance conferred by neuronal expression of dominant-negative Rac in adult Drosophila melanogaster. J Neurogenet. 2011;25(1-2):35-39.
- Williams KW, et al. Xbp1s in Pomc neurons connects ER stress with energy balance and glucose homeostasis. Cell Metab. 2014;20(3):471-482.
- Kim JG, Ea JY, Yoon BJ. Orexinergic neurons modulate stress coping responses in mice. Front Mol Neurosci. 2023;16:1140672.
- Jovaisaite V, Mouchiroud L, Auwerx J. The mitochondrial unfolded protein response, a conserved stress response pathway with implications in health and disease. J Exp Biol. 2014;217(Pt 1):137-143.
- Richter K, Haslbeck M, Buchner J. The heat shock response: life on the verge of death. Mol Cell. 2010;40(2):253-266.
- Hetz C, Zhang K, Kaufman RJ. Mechanisms, regulation and functions of the unfolded protein response. Nat Rev Mol Cell Biol. 2020;21(8):421-438.
- Finkel T. Signal transduction by reactive oxygen species. J Cell Biol. 2011;194(1):7-15.
- Hu C, et al. Heat shock proteins: biological functions, pathological roles, and therapeutic opportunities. MedComm (2020). 2022;3(3):e161.
- Lithgow GJ, White TM, Hinerfeld DA, Johnson TE. Thermotolerance of a long-lived mutant of Caenorhabditis elegans. J Gerontol. 1994;49(6):B270-6.
- Krshnan L, van de Weijer ML, Carvalho P. Endoplasmic reticulum-associated protein degradation. Cold Spring Harb Perspect Biol. 2022;14(12):a041247.
- Naidoo N. ER and aging-protein folding and the ER stress response. Ageing Res Rev. 2009;8(3):150-159.
- Heifetz A, Keenan RW, Elbein AD. Mechanism of action of tunicamycin on the UDP-GlcNAc:dolichyl-phosphate Glc-NAc-1-phosphate transferase. Biochemistry. 1979;18(11):2186-2192.
- Guo Y, et al. Mitochondrial dysfunction in aging. Ageing Res Rev. 2023;88:101955.
- Murphy MP. How mitochondria produce reactive oxygen species. Biochem J. 2009;417(1):1-13.
- Xu X, Pang Y, Fan X. Mitochondria in oxidative stress, inflammation and aging: from mechanisms to therapeutic advances. Signal Transduct Target Ther. 2025;10(1):190.
- Bus JS, Gibson JE. Paraquat: model for oxidant-initiated toxicity. Environ Health Perspect. 1984;55:37-46.
- Park HH, Jung Y, Lee SV. Survival assays using Caenorhabditis elegans. Mol Cells. 2017;40(2):90-99.
- Zevian SC, Yanowitz JL. Methodological considerations for heat shock of the nematode Caenorhabditis elegans. . 2014;68(3):450-457.
- Keith SA, Amrit FR, Ratnappan R, Ghazi A. The C. elegans healthspan and stress-resistance assay toolkit. . 2014;68(3):476-486.
- Senchuk MM, Dues DJ, Van Raamsdonk JM. Measuring oxidative stress in Caenorhabditis elegans: paraquat and juglone sensitivity assays. Bio Protoc. 2017;7(1):e2086.
- Golden NL, Plagens RN, Kim Guisbert KS, Guisbert E. Standardized for measuring induction of the heat shock response in Caenorhabditis elegans. J Vis Exp. 2020;(161):e61030.
- Bar-Ziv R, et al. Measurements of physiological stress responses in C. elegans. J Vis Exp. 2020;(159):e61001.
- Rahman M, et al. NemaLife chip: a micropillar-based microfluidic culture device optimized for aging studies in crawling C. elegans. Sci Rep. 2020;10(1):16190.
- Rafikova A, Hu Q, Kubiseski TJ. The SEM-4 transcription factor is required for regulation of the oxidative stress response in Caenorhabditis elegans. G3 (Bethesda). 2020;10(9):3379-3385.
- Liang J, et al. Chloride intracellular channel proteins respond to heat stress in Caenorhabditis elegans. PLoS One. 2017;12(9):e0184308.
- Han SK, et al. OASIS 2: online application for survival analysis 2 with features for the analysis of maximal lifespan and healthspan in aging research. Oncotarget. 2016;7(35):56147-56152.
- Kitto ES, et al. The hypoxic response extends lifespan through a bioaminergic and peptidergic neural circuit. eLife. 2025;14:RP107651.
- Miller DL, Roth MB. C. elegans are protected from lethal hypoxia by an embryonic diapause. Curr Biol. 2009;19(14):1233-1237.
- Miller HA, et al. Serotonin and dopamine modulate aging in response to food odor and availability. Nat Commun. 2022;13(1):3271.
- Beydoun S, Sridhar A, Bhandari M, Kitto ES, Leiser SF. Polyethylene glycol as an improved barrier to prevent fleeing in C. elegans. MicroPubl Biol. 2024.
- Sellegounder D, et al. Octopaminergic signaling mediates neural regulation of innate immunity in Caenorhabditis elegans. mBio. 2018;9(5):e01645-18.
- Wang X, et al. Dimorphic neural network architecture prioritizes sexual-related behaviors in male Caenorhabditis elegans. eLife. 2026;14:RP102309.
- Alkema MJ, Hunter-Ensor M, Ringstad N, Horvitz HR. Tyramine functions independently of octopamine in the Caenorhabditis elegans nervous system. Neuron. 2005;46(2):247-260.
- Wang C, et al. A neurotransmitter atlas of C. elegans males and hermaphrodites. eLife. 2024;13:RP95402.
- Stroustrup N, et al. The Caenorhabditis elegans lifespan machine. Nat. 2013;10(7):665-670.
- Felker DP, Robbins CE, McCormick MA. Automation of C. elegans lifespan measurement. Transl Med Aging. 2020;4:1-10.
- Banse SA, et al. Automated lifespan determination across Caenorhabditis strains and species reveals assay-specific effects of chemical interventions. Geroscience. 2019;41(6):945-960.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar