Dit protocol demonstreert detergent-gemedieerde reconstitutie van een membraaneiwit, cytochroom bo3 ubiquinol oxidase, tot grote unilamellaire blaasjes gemaakt van PDMS-g-PEO en hun omzetting in gigantische blaasjes via fusie-elektroformatie. De resulterende functionele polymeercompartimenten zijn geschikt voor geavanceerde biochemische en biofysische studies.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Bereiding van membraaneiwit-gefunctionaliseerde polymeer en polymeer/lipide hybride grote en gigantische unilamellaire blaasjes
In dit artikel
Samenvatting
Samenvatting
Blaasjes gevormd uit amfifiele copolymeren, alleen of gemengd met fosfolipiden, bieden superieure mechanische en chemische stabiliteit vergeleken met conventionele lipideblaasjes. Dit maakt ze een aantrekkelijk chassis, dat verder ontwikkeld en uitgebreid kan worden om specifieke toepassingen mogelijk te maken, zoals medicijnafgifte, diagnostische biosensing, de bouw van kunstmatige cellen en bio-geïnspireerde micro- en nanoreactoren. In het bijzonder is functionalisatie door membraaneiwitincorporatie essentieel voor veel van deze toepassingen. Hier presenteren we een protocol voor het bereiden van membraaneiwit-gefunctionaliseerde grote unilamellaire vesikels (LUV's) uit het graftcopolymeer PDMS-g-PEO via detergent-gemedieerde reconstitutie. Verder beschrijven we hoe deze grote blaasjes kunnen worden omgezet in gigantische unilamellaire blaasjes (GUV's) met behulp van een fusie-elektroformatiebenadering. Het protocol omvat fluorescentielabeling van membraaneiwitten, voorbereiding van polymeer- en hybride LUV's, membraaneiwitreconstitutie, analyse van grootteverdeling via dynamische lichtverstrooiing (DLS), beoordeling van eiwitactiviteit via zuurstofverbruiksmetingen, bereiding van eiwit-functionaliseerde GUV's, en analyse van eiwitinsertie en protonpompactiviteit in GUV's via confocale microscopie. Representatieve resultaten tonen de vorming aan van monodisperse proteo-LUV's met een polydispersie-index (PDI) onder 0,2, en succesvolle generatie van proteo-GUV's variërend van 5–35 μm in diameter. De eiwitactiviteit wordt bevestigd door zuurstofopnamemetingen in zowel polymeer-LUV's (18,2 nmol/min/mL) als hybride LUV's (26,9 nmol/min/mL). Eiwitinsertie in GUV's wordt gekwantificeerd via fluorescentie-intensiteit, wat resulteert in 20,6 ± 3,7 a.u. voor polymeer-GUV's en 26,2 ± 5,0 a.u. voor hybride GUV's. De activiteit van de protonpomp in GUV's, gemonitord via een ingekapselde pH-gevoelige kleurstof, is consistent met de functionaliteit van eiwitten, waarbij inwendige protonpompen de overhand heeft. De mechanische zachtheid en lipideachtige dubbellaagdikte van het copolymeer (~5,3 nm) ondersteunen efficiënte eiwitinsertie en behoud van functionaliteit.
Inleiding
Amfifiele blokcopolymeren kunnen zichzelf assembleren in waterige oplossing tot membranen, die spontaan krommen en sluiten om bolvormige, membraanomheinde compartimenten te vormen die bekend staan als polymersomen (polymeerblaasjes). In vergelijking met lipidemembranen bieden polymeergebaseerde compartimenten een grotere chemische veelzijdigheid en verbeterde chemische1 en mechanische stabiliteit2, waardoor ze zeer aantrekkelijk zijn voor toepassingen zoals medicijnafgifte, nano- en microreactoren, en de bouw van duurzame kunstcellen. Zowel onze groep als anderen hebben polymeermembranen gefunctionaliseerd door membraaneiwitten in te brengen om kunstmatige organellen en cellente creëren 1,3,4,5,6,7,8,9,10,11,12,13,14,15 . Polymeren met een poly(dimethylsiloxaan) (PDMS) hydrofobe kern zijn bijzonder geschikt voor de incorporatie van membraaneiwitten vanwege de hoge ketenflexibiliteit en de mogelijkheid om de hydrofobe dikte van het membraan beter aan te passen bij het transmembraandomein5 van het eiwit. Hoewel ons laboratorium zich voornamelijk heeft gericht op het graft copolymeer poly(dimethylsiloxaan)-graft-poly(ethyleenoxide) (PDMS-g-PEO), dat zeer dynamische membranen vormt 4,16,17 die zachter zijn dan conventionele lipide-dubbellagen en een dikte van ongeveer 5,3 nm1 vertonen, hebben andere groepen met succes PDMS-gebaseerde triblokcopolymeren zoals PMOXA-b-PDMS-b-PMOXA5 toegepast,6,7,8,9,10,11 en PEtOz-b-PDMS-b-PEtOz12 voor membraaneiwitreconstitutie. Zelfs relatief rigide diblokcopolymeren zoals PBD-b-PEO, vooral in hybride systemen gemengd met lipiden, zijn gebruikt voor succesvolle eiwitopname13. Deze voorbeelden benadrukken de veelzijdigheid van polymeergebaseerde membranen als reconstitutieplatforms, die bovendien een verbeterde chemische stabiliteit1 en een verlengde functionele levensduur14 kunnen bieden voor geïntegreerde membraaneiwitten. Hoewel polymeer/lipidehybride membranen niet altijd de chemische stabiliteit van zuivere polymeersystemen1 evenaren, bieden ze een aantrekkelijk compromis door de mechanische robuustheid van polymeren te combineren met de biologische relevantie van lipiden. Dit resulteert in een membraanomgeving die beter lijkt op inheemse biologische membranen, terwijl de belangrijkste voordelen van synthetische materialen behouden blijven. Dergelijke hybride architecturen kunnen extra voordelen bieden, waaronder een verminderde protonpermeabiliteit die ontstaat door nanoschaalherschikking1 en domeinvorming binnen het membraan15.
Er bestaan verschillende technieken om membraaneiwitten te reconstitueren tot nanogrote blaasjes (LUV's), waaronder organisch-oplosmiddelgemedieerde reconstitutie (bijv. reverse-fase verdamping, rehydratatie van lipide-eiwitfilms), mechanische benaderingen (bijv. sonicatie, French press, vries-dooi) en detergent-gemedieerde reconstitutie (via detergentverwijdering, verdunning of directe inbouw)18, en recentere strategieën zoals directe overdracht van styreen-maleïnezuur copolymeer-nanodiscs19. Porines zijn met succes opgenomen in polymeer-LUV's via directe insertie, bijvoorbeeld door het eiwit aan de polymeerfilm toe te voegen tijdens rehydratatie8. Deze aanpak resulteert over het algemeen in een lage insertie-efficiëntie voor grotere of complexere membraaneiwitten en leidt vaak tot willekeurige eiwitoriëntatie. Daarom blijft detergent-gemedieerde reconstitutie, waarbij gecontroleerd wasmiddel wordt toegevoegd gevolgd door het verwijderen, de meest gebruikte methode. Het is ook de voorkeursstrategie om grotere membraaneiwitten in polymeer-gebaseerde LUV's te integreren, vooral voor asymmetrische eiwitten waarbij gecontroleerde oriëntatie cruciaal is voor de functie. Bij deze benadering worden membranen van blaasjes eerst verzadigd met het gewenste detergent (de verzadigde detergentconcentratie wordt aangeduid als Rsat), gedeeltelijk opgelost (co-existentie van blaasjes en micellen), of volledig opgelost, d.w.z. afgebroken tot micellen (detergentconcentratie wordt aangeduid als Rsol). Deze eerste membraanbehandeling wordt gevolgd door eiwittoevoeging, incubatie en detergentverwijdering18. Dit laatste kan worden bereikt via dialyse, grootte-uitsluitingschromatografie of adsorptie op hydrofobe polystyreenkralen (bijv. Bio-Beads). De keuze van detergent, concentratie en verwijderingsmethode zijn geoptimaliseerd voor elk membraantype en eiwit om de incorporatie-efficiëntie te maximaliseren en de eiwitoriëntatiete beheersen.
Hoewel LUV's goed geschikt zijn voor bulkactiviteitenmetingen, vereisen enkelblaasstudies en analyses op basis van optische microscopie dat membraaneiwitten worden gereconstitueerd tot gigantische unilamellaire blaasjes (GUV's). Vijf hoofdbenaderingen worden gebruikt voor eiwitincorporatie in GUV's: coformatie in aanwezigheid van eiwit en organisch oplosmiddel21, coformatie in aanwezigheid van detergent22, invoeging in voorgevormde GUV's via detergentverdunning23, invoeging via membraanfusie met proteo-LUV's16,24, en fusie-elektroformatie25. Hoewel deze benaderingen met succes zijn toegepast op lipide GUV's, is hun overdracht naar polymeer- of polymeer/lipidehybride GUV's vaak uitdagend. In het bijzonder leiden co-formatie- en detergent-verdunningsmethoden vaak tot lage insertie-efficiënties in polymeermembranen of zijn ze onverenigbaar met bepaalde polymeersamenstellingen15. Fusie-gebaseerde strategieën 4,16,24,26,27 die afhankelijk zijn van extra fusogene middelen kunnen ook problematisch zijn, aangezien synthetische kationische lipiden/polymeren of fusogene peptiden de stabiliteit van membraaneiwitten kunnen aantasten, de membraaneigenschappen kunnen veranderen of de incorporatie-efficiëntie van het doeleiwit kunnen verminderen. Fusie-elektroformatie overwint veel van deze beperkingen en is bewezen een robuuste en efficiënte methode te zijn om membraaneiwitten te integreren in polymeer- en polymeer/lipidehybride GUV's 1,5,15. Deze aanpak maakt gecontroleerde eiwitopname mogelijk, terwijl membraanintegriteit en eiwitfunctionaliteit behouden blijven, waardoor het bijzonder geschikt is voor de generatie van eiwitgefunctionaliseerde polymeer-GUV's.
Het reconstitueren van protonpompen in polymeer-gebaseerde blaasjes is essentieel voor het construeren van duurzame kunstcellen, omdat het de generatie van transmembrane protongradiënten mogelijk maakt—de fundamentele energie-eenheid van levende systemen. Door chemiosmotische energieconversie te recreëren in een gecontroleerde minimale membraanomgeving28, kunnen deze blaasjes ATP-synthese, actief transport en metabole reacties aansturen, waarmee de energetische basis wordt gelegd die nodig is voor autonome, levensechte functionaliteit. Een representatieve protonpomp die in dergelijke systemen wordt gebruikt, is cytochroom bo3 oxidase uit E. coli, een terminale respiratoire enzym die zuurstofreductie koppelt aan protontranslocatie over het membraan. Omdat elektronenoverdracht en protonpompen nauw gekoppeld zijn, kan hun activiteit in synthetische blaasjes kwantitatief worden gemonitord, hetzij door zuurstofverbruik 1,20 of door het volgen van protongradiëntvorming1.
In dit protocol presenteren we een gedetailleerde workflow voor de voorbereiding van PDMS-g-PEO-gebaseerde LUV's, inclusief pure polymeer- en polymeer/lipidehybride membranen, hun functionalisatie met membraaneiwitten, opschaling naar GUV's en activiteitsmetingen van de gereconstitueerde protonpomp cytochroom bo3 oxidase via zowel bulk-zuurstofverbruiksassays als single-vesikel-protonpompmetingen.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
OPMERKING: Al het gevaarlijke chemische afval dat tijdens dit protocol wordt geproduceerd, moet worden afgevoerd in overeenstemming met institutionele en lokale regelgeving.
1. Voorbereiding op Bio-Beads SM-2
OPMERKING: Bio-Beads SM-2 worden voorgewassen met methanol om conserveermiddelen en organische verontreinigingen te verwijderen voorafgaand aan detergentadsorptie.
- Plaats filterpapier in een glazen trechter die boven een schoon glazen bekerglas of fles is geplaatst.
- Voeg minstens 600 mg Bio-Beads SM-2 toe aan de trechter (voldoende voor 3 herhalingen van reconstitutie voor zowel hybride als polymeer LUV's).
OPMERKING: Een minimum van 90 mg Bio-Beads SM-2 is vereist per reconstitutie, zoals gespecificeerd in stap 4.4.1. Een grotere hoeveelheid kan worden bereid als er meer reconstructies worden gepland. - Was de kralen drie keer met pure methanol, waarbij je voldoende volume gebruikt om de kralen elke keer volledig onder te dompelen.
VOORZICHTIG: Voer alle stappen voor de behandeling van methanol uit in een chemische afzuigkap. - Was de kralen onmiddellijk drie keer met Milli-Q water om restanten van methanol te verwijderen.
OPMERKING: Laat de kralen niet drogen tijdens het wassen. Zorg er bij het verwijderen van wasmiddelen voor dat de kralen vochtig blijven en niet volledig droog worden. - Breng de gewassen kralen over in een geschikte opslagcontainer (bijvoorbeeld een steriele 50 mL polypropyleen centrifugebuis of glazen fles met een goed afgesloten dop), voeg Milli-Q water toe totdat de kralen volledig onder water zijn en bewaar tot 3 maanden bij 4 °C.
2. Fluorescentielabeling van membraaneiwitten
- Eiwitverdunning
- Los cytochroom bo3 oxidase op tot 2,2 mg/mL in een 20 mM HEPES-buffer met 0,05% n-dodecyl β-D-maltoside (DDM) (w/v), pH 8,3. Deze pH zorgt voor een voldoende aandeel niet-geprotoneerde (reactieve) primaire aminen voor efficiënte labeling.
OPMERKING: Voor optimale etikettering met ATTO N-hydroxysuccinimidyl (NHS) kleurstoffen, houd de buffer-pH tussen 8,3 en 8,5. Voor andere kleurstoffen volgt u de instructies van de fabrikant voor eiwitconjugatie, inclusief de aanbevolen etiketteringsvoorwaarden.
- Los cytochroom bo3 oxidase op tot 2,2 mg/mL in een 20 mM HEPES-buffer met 0,05% n-dodecyl β-D-maltoside (DDM) (w/v), pH 8,3. Deze pH zorgt voor een voldoende aandeel niet-geprotoneerde (reactieve) primaire aminen voor efficiënte labeling.
- Kleurstoftoevoeging
- Voeg een achtvoudig molair overschot aan amine-reactief ATTO 643 N-hydroxysuccinimidyl (NHS) ester, opgelost bij 2 mg/mL in anhydre DMSO, toe aan de eiwitoplossing.
OPMERKING: Voor andere kleurstoffen volgt u de instructies van de fabrikant voor eiwitconjugatie, inclusief het aanbevolen overschot van kleurstof tot eiwitmolaire. - Meng voorzichtig door drie keer op de microcentrifugebuis te tikken om een homogene verspreiding van de kleurstof te garanderen.
- Voeg een achtvoudig molair overschot aan amine-reactief ATTO 643 N-hydroxysuccinimidyl (NHS) ester, opgelost bij 2 mg/mL in anhydre DMSO, toe aan de eiwitoplossing.
- Incubatie
- Incubeer het reactiemengsel bij kamertemperatuur (20–25 °C) gedurende 1,5 uur onder zachte beweging (250 tpm) in een thermomixer, in het donker om fotobleeken te voorkomen.
- Verwijdering van ongebonden kleurstof
- Breng de Superdex 200 10/300 GL-kolom (CV: 23,562 mL) in evenwicht met ten minste 2 kolomvolumes (ongeveer 48 mL) membraaneiwit-elusiebuffer (20 mM HEPES, pH 7,5, 200 mM KCl, 0,05% DDM (w/v)) bij een debiet van 0,3 mL/min met behulp van een ÄKTA-zuiveringssysteem.
OPMERKING: Voor het verwijderen van overtollige fluorescerende kleurstof zijn kortere gelfiltratiekolommen (10–20 cm bedlengte) over het algemeen voldoende, vooral voor minder hydrofiele kleurstoffen. De verffabrikant raadt aan om te ontzouten met een Sephadex G-25 matrix. Een Superdex 200 10/300 GL-kolom werd in deze studie gebruikt vanwege de beschikbaarheid van het instrument. - Laad tot 500 μL van het gelabelde eiwit met een capillaire lus van 1 mL en elueer met dezelfde buffer bij 0,3 mL/min.
- Monitor de elutie door de absorptie te meten bij 280 nm voor eiwit en 643 nm voor ATTO 643 kleurstof.
- Verzamel 0,5 mL fracties over volumes van 1,5 kolom. Identificeer fracties die zowel eiwit als kleurstof bevatten. Gebruik direct als het voldoende geconcentreerd is, of concentreer met Amicon centrifugale filterunits. Voor concentratie met Amicon-filters gebruik je een centrifugaalfilter met een molecuulgewichtsgrens van 30 kDa en centrifugeer je op 14.000 × g gedurende 30 minuten bij 4 °C.
- Breng de Superdex 200 10/300 GL-kolom (CV: 23,562 mL) in evenwicht met ten minste 2 kolomvolumes (ongeveer 48 mL) membraaneiwit-elusiebuffer (20 mM HEPES, pH 7,5, 200 mM KCl, 0,05% DDM (w/v)) bij een debiet van 0,3 mL/min met behulp van een ÄKTA-zuiveringssysteem.
- Bepaling van eiwitconcentratie en mate van labeling (DOL)
- Meet de absorptiespectra van het gezuiverde geconjugeerde.
- Bereken de eiwitconcentratie en het gemiddelde aantal kleurstofmoleculen per enzym met behulp van:
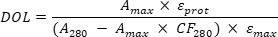
waarbij Amax de absorptie van het geconjugeerde object bij het kleurstofabsorptiemaximum (λabs; ATTO 643, λ = 643 nm), A280 is de absorptie bij 280 nm (absorptiemaximum van eiwitten), εprot is de molaire extinctiecoëfficiënt van gedenatureerd cytochroom bo3 oxidase (184.720 M⁻1cm⁻1), εkleurstof is de molaire extinctiecoëfficiënt van de kleurstof (150.000 M⁻1cm⁻1), en CF280 is de correctiefactor voor ATTO 643 absorptie bij 280 nm (0,04).
3. Bereiding van grote unilamellaire blaasjes (LUV's)
- Bereiding van een dunne polymeer of polymeer/lipidefilm
- Gebruik verplaatsingspipetten met oplosmiddelbestendige tips of gasdichte glazen spuiten om polymeer-, lipide- en fluorescerende kleurstofoplossingen, opgelost in chloroform:methanol (2:1, v/v), over te brengen in een schoon glazen flesje volgens de samenstellingen vermeld in Tabel 1.
VOORZICHTIG: Voer alle oplossing onder een afzuigkap terwijl je beschermende handschoenen en veiligheidsbril draagt. - Meng de oplossing grondig door zachtjes te vortexen terwijl je het flesje rechtop houdt om homogeniteit te garanderen.
VOORZICHTIG: Pas de vortexsnelheid zorgvuldig aan om te voorkomen dat de vloeistof spat of uit het flesje op je handen spuit. - Verdamp de organische oplosmiddelen onder een zachte stroom stikstof in de afzuigkap gedurende ongeveer 1 uur, totdat er een uniforme dunne film op de buiswand vormt (Figuur 1).
OPMERKING: Pas de stikstofstroom zo aan dat de vloeistof zachtjes beweegt zonder te spetteren; Een te hoge stroming kan leiden tot ongelijkmatige filmvorming. Na 5–10 minuten kan de stroom iets worden verhoogd om volledige droogte en gelijkmatige verspreiding van het blaasmengsel over de bodem van het flesje te waarborgen.
- Gebruik verplaatsingspipetten met oplosmiddelbestendige tips of gasdichte glazen spuiten om polymeer-, lipide- en fluorescerende kleurstofoplossingen, opgelost in chloroform:methanol (2:1, v/v), over te brengen in een schoon glazen flesje volgens de samenstellingen vermeld in Tabel 1.
- Filmrehydratatie
- Rehydrateer de gedroogde film met 1 mL rehydratiebuffer (1 mM Tris-HCl, pH 7,5, 200 mM sucrose) om een uiteindelijke amfifielconcentratie van 5 mg/mL te verkrijgen (overeenkomend met 1,67 mM voor polymersomen en 2,14 mM voor hybride vesikels). Als polymersomen worden gebruikt voor reconstitutie, vul dan de rehydratatiebuffer aan met 0,1% natriumcholaat.
VOORZICHTIG: Natriumcholaat is een milde irriterende stof. Vermijd langdurig huidcontact en het inademen van poeder. Hanteer volgens het veiligheidsinformatieblad van de fabrikant (SDS). - Vortex krachtig totdat de film volledig losgekoppeld en opgehangen is, waarbij multilamellaire blaasjes (MLV's) ontstaan.
- Rehydrateer de gedroogde film met 1 mL rehydratiebuffer (1 mM Tris-HCl, pH 7,5, 200 mM sucrose) om een uiteindelijke amfifielconcentratie van 5 mg/mL te verkrijgen (overeenkomend met 1,67 mM voor polymersomen en 2,14 mM voor hybride vesikels). Als polymersomen worden gebruikt voor reconstitutie, vul dan de rehydratatiebuffer aan met 0,1% natriumcholaat.
- Vries-dooicycli (alleen hybride blaasjes)
- Onderwerp hybride MLV-suspensies aan vijf vries-ontdooicycli als volgt: vries de monsters in vloeibare stikstof gedurende 1 minuut, ontdooi ze in een waterbad van 35 °C tot ze volledig gesmolten zijn, en vortex 300–3000 rpm gedurende 30 seconden met een buisshaker. Herhaal deze procedure in totaal vijf cycli.
OPMERKING: Sla deze stap over voor pure polymersomen.
VOORZICHTIG: Vloeibare stikstof (−196 °C) kan ernstige cryogene brandwonden veroorzaken. Hanteer het in een goed geventileerde ruimte met geschikte PBM (cryogene handschoenen, veiligheidsbril en een labjas). Vermijd contact met huid en ogen.
- Onderwerp hybride MLV-suspensies aan vijf vries-ontdooicycli als volgt: vries de monsters in vloeibare stikstof gedurende 1 minuut, ontdooi ze in een waterbad van 35 °C tot ze volledig gesmolten zijn, en vortex 300–3000 rpm gedurende 30 seconden met een buisshaker. Herhaal deze procedure in totaal vijf cycli.
- Extrusie
- Breng de vesikelsuspensie over naar een mini-extruder uitgerust met een polycarbonaatmembraan van 100 nm poriegrootte.
- Extrudeer de suspensie 21 keer om grootte-homogene LUV's te verkrijgen.
OPMERKING: Zorg ervoor dat de laatste extrusiestap de LUV-suspensie in de spuit tegenover de initiële laadspuit achterlaat. Dit minimaliseert besmetting van het eindmonster met grotere blaasjes of restmateriaal dat mogelijk niet volledig door het membraan is gegaan.
- Opslag
- Bewaar de LUV-suspensie bij 4 °C en gebruik deze binnen een week om de verdeling van de blaasgrootte te behouden en aggregatie of microbiële groei in de sucrosehoudende buffer te voorkomen.
- Homogeniseer de LUV-suspensie voor gebruik voorzichtig door vortexen.
4. Reconstitutie van membraaneiwit in LUV's
- Voorbehandeling van blaasjes met detergent
- Breng 200 μL LUV's over in een 2 mL microcentrifugebuis (Figuur 1). Bij gebruik van hybride LUV's voeg je 1 μL van 20% (w/v) natriumcholaat toe om een uiteindelijke detergentconcentratie van 0,1% (w/v) te verkrijgen. Bij gebruik van polymeer LUV's is geen extra detergent nodig omdat natriumcholaat al aanwezig is.
OPMERKING: Bereid de detergentvoorraad voor in dezelfde buffer als voor de experimenten om compatibiliteit met de blaasjes te waarborgen. - Meng voorzichtig door de microcentrifugebuis drie keer licht te tikken. Vermijd hevige beweging of vortexvorming, die schuim kan vormen en luchtbellen kan veroorzaken.
- Breng 200 μL LUV's over in een 2 mL microcentrifugebuis (Figuur 1). Bij gebruik van hybride LUV's voeg je 1 μL van 20% (w/v) natriumcholaat toe om een uiteindelijke detergentconcentratie van 0,1% (w/v) te verkrijgen. Bij gebruik van polymeer LUV's is geen extra detergent nodig omdat natriumcholaat al aanwezig is.
- Introductie van eiwitten in detergent-behandelde blaasjes
- Voeg cytochroom bo3 oxidase (voor activiteitsmetingen) of cytochroom bo3 oxidase–ATTO 643 (voor fluorescentiebeeldvorming) toe aan de detergent-gedestabiliseerde blaasjes om de volgende uiteindelijke eiwitconcentraties te bereiken: voor polymersomen, 0,556 μM voor LUV-experimenten en 1,112 μM voor GUV-experimenten; voor hybride vesikels, 0,714 μM voor LUV-experimenten en 1,428 μM voor GUV-experimenten.
OPMERKING: Deze concentraties komen overeen met een eiwit-naar-polymeer molaire verhouding van 1:3.000 voor LUV's en 1:1.500 voor GUV's. - Voeg het eiwit langzaam toe terwijl je voorzichtig mengt, met als doel het gelijkmatig over de oplossing te verdelen en lokale overconcentratie te voorkomen.
OPMERKING: Het toegevoegde eiwitvolume kan per fractie variëren door verschillen in eiwitvoorraadconcentratie.
- Voeg cytochroom bo3 oxidase (voor activiteitsmetingen) of cytochroom bo3 oxidase–ATTO 643 (voor fluorescentiebeeldvorming) toe aan de detergent-gedestabiliseerde blaasjes om de volgende uiteindelijke eiwitconcentraties te bereiken: voor polymersomen, 0,556 μM voor LUV-experimenten en 1,112 μM voor GUV-experimenten; voor hybride vesikels, 0,714 μM voor LUV-experimenten en 1,428 μM voor GUV-experimenten.
- Assemblage van eiwit-detergent-polymeercomplexen
- Incubeer het mengsel bij 4 °C gedurende 30 minuten met milde beweging (400 rpm) in een thermomixer om de vorming van gemengde eiwit-detergent-polymeer-assemblages vóór het verwijderen van het detergent mogelijk te maken.
- Detergent verwijderen
- Verwijder wasmiddel door sequentiële toevoeging van Bio-Beads SM-2 (Bio-Rad). Haal 30 mg Bio-Beads uit de opslagoplossing, zodat ze vochtig blijven (nat, maar zonder overtollig vocht). Voeg de kralen toe aan het monster en incubeer 30 minuten bij 4 °C met zachte beweging bij 600 toeren per minuut in een thermomixer. Herhaal deze stap nog twee keer, voor een totaal van 90 mg Bio-Beads en een totale incubatietijd van 1,5 uur.
OPMERKING: Gebruik alleen volledig gehydrateerde bio-kralen. Plaats geen droge kralen, kralen die aan de wanden van de Bio-Beads stock tube blijven plakken, of kralen die aan het oppervlak zweven. Als de kralen na toevoeging aan de wand van de reconstitutiebuis boven het vloeistofniveau blijven hechten, centrifugeer dan kort de buis (bijvoorbeeld 3–5 s in een minicentrifuge op een werkbank) om de kralen onderaan te verzamelen vóór de incubatie. - Pellet de Bio-Beads door centrifugatie op 2.000 × g gedurende 2 minuten met een mini-centrifuge op het werk. Verzamel het supernatant zorgvuldig zonder de kraalkorrel te verstoren.
OPMERKING: Als alternatief voor centrifugatie laat je de kralen ongeveer 5 minuten door de zwaartekracht zakken en verwijder je daarna voorzichtig het supernatant.
- Verwijder wasmiddel door sequentiële toevoeging van Bio-Beads SM-2 (Bio-Rad). Haal 30 mg Bio-Beads uit de opslagoplossing, zodat ze vochtig blijven (nat, maar zonder overtollig vocht). Voeg de kralen toe aan het monster en incubeer 30 minuten bij 4 °C met zachte beweging bij 600 toeren per minuut in een thermomixer. Herhaal deze stap nog twee keer, voor een totaal van 90 mg Bio-Beads en een totale incubatietijd van 1,5 uur.
- Opslag
- Bewaar gereconstitueerde bo 3-LUVs bij 4 °C en gebruik ze dezelfde dag voor eiwitactiviteitsmetingen.
5. Grootte en dispersiteit van LUV's door dynamische lichtverstrooiing (DLS)
- LUV's laden voor DLS-metingen
- Breng 45 μL onverdund LUV- of proteo-LUV-ophanging over in een schone kwartscuvet. Zorg ervoor dat de cuvette vrij is van stof, vingerafdrukken of andere resten om lichtverstrooiingsartefacten te minimaliseren.
OPMERKING: Vermijd het introduceren van luchtbellen, omdat deze de DLS-metingen kunnen verstoren. Om belletjes te voorkomen, pipette je het monster langzaam langs de wand van de cuvette en stoot je de laatste druppel niet krachtig uit. Als er kleine belletjes ontstaan, laat ze dan opstijgen en oplossen voordat je meet.
- Breng 45 μL onverdund LUV- of proteo-LUV-ophanging over in een schone kwartscuvet. Zorg ervoor dat de cuvette vrij is van stof, vingerafdrukken of andere resten om lichtverstrooiingsartefacten te minimaliseren.
- Bepaling van LUV-grootte en dispersiteit door DLS
- Meet de hydrodynamische diameter en polydispersie-index (PDI) met een DLS-instrument uitgerust met een 633 nm helium-neon laser en terugverstrooiingsdetectie bij een vaste hoek van 173°.
- Voer minstens drie onafhankelijke metingen per monster uit om reproduceerbaarheid te waarborgen.
- Analyseer de gegevens met behulp van het algemene (normale verdeling) model om de gemiddelde grootte en PDI te verkrijgen.
6. Analyse van zuurstofverbruik van LUV's
- Temperatuurinstelling
- Stel de meetkamer van een Clark-type zuurstofelektrodesysteem in op 22 °C en laat het systeem in evenwicht komen.
- Toevoeging van buffer
- Voeg 1 mM Tris-HCl (pH 7,5), 200 mM sucrosebuffer toe aan de meetkamer tot een totaalvolume van 1.000 μL. Pas het buffervolume aan volgens het monstertype: 942,9 μL voor polymeer Bo 3-LUV's en 953,7 μL voor hybride Bo 3-LUV's.
OPMERKING: Het resterende volume wordt ingenomen door LUV's en het DTT/Q₁-mengsel om het uiteindelijke meetvolume te bereiken.
- Voeg 1 mM Tris-HCl (pH 7,5), 200 mM sucrosebuffer toe aan de meetkamer tot een totaalvolume van 1.000 μL. Pas het buffervolume aan volgens het monstertype: 942,9 μL voor polymeer Bo 3-LUV's en 953,7 μL voor hybride Bo 3-LUV's.
- Toevoeging van VID's
- Voeg bo 3-LUV's toe aan de meetkamer en begin voorzichtig te roeren met de magnetische roeraar bij 100 rpm en 22 °C. Pas het volume van bo 3-LUV's aan om een theoretische bo3 oxidaseconcentratie van ongeveer 27 nM te bereiken: 48,6 μL voor polymeer bo 3-LUV's en 37,8 μL voor hybride bo 3-LUV's.
OPMERKING: Voor de negatieve controle vervang bo 3-LUV's door een gelijk volume eiwitvrije LUV's met dezelfde lipide/polymeersamenstelling en concentratie. Alle volgende stappen blijven identiek.
- Voeg bo 3-LUV's toe aan de meetkamer en begin voorzichtig te roeren met de magnetische roeraar bij 100 rpm en 22 °C. Pas het volume van bo 3-LUV's aan om een theoretische bo3 oxidaseconcentratie van ongeveer 27 nM te bereiken: 48,6 μL voor polymeer bo 3-LUV's en 37,8 μL voor hybride bo 3-LUV's.
- Basismeting
- Laat de zuurstofconcentratie stabiliseren en meet gedurende 3 minuten onder constant roeren bij 22 °C om een stabiele basislijn te verkrijgen.
- Bereiding van een reducerend/kinonmengsel
- Bereid het DTT/Q₁-mengsel direct voor gebruik vers voor gebruik door 9,6 μL van 1 M DTT in Milli-Q water te mengen met 0,6 μL 80 mM ubiquinon-1 (Q₁) in DMSO, en vortex vervolgens grondig te laten vortexen om homogeniteit te waarborgen.
- Enzymactivatie
- Activeer bo3-oxidase door 8,5 μL van het vers bereide DTT/Q₁-mengsel aan de meetkamer toe te voegen, wat resulteert in de uiteindelijke concentraties van 8 mM DTT en 40 μM Q₁.
- Replicates
- Meet elk monster drie keer om reproduceerbaarheid te garanderen.
- Data-analyse
- Plot de zuurstofconcentratie versus de tijd. Bepaal de helling van het lineaire deel van de kromme, die overeenkomt met het zuurstofverbruik.
- Verslaggeving
- Rapporteer het zuurstofverbruik als het gemiddelde van drie metingen, met de standaarddeviatie.
7. Bereiding van eiwit-gefunctionaliseerde GUV's
- Plasmareiniging van ITO-gecoate glazen glaasjes
- Plaats de met indiumtinoxide (ITO) gecoate glasschuifstukken in de plasmareiniger met de geleidende (ITO-gecoate) zijde naar boven gericht. Plasma reinigt ze 1 minuut op hoge vermogensstand ("HI") (230 V, maximaal RF-vermogen 18 W) en een druk van ongeveer 0,5 mbar.
OPMERKING: Succesvolle plasmaontsteking kan visueel worden bevestigd door het verschijnen van een roze/paarse gloed in de kamer.
- Plaats de met indiumtinoxide (ITO) gecoate glasschuifstukken in de plasmareiniger met de geleidende (ITO-gecoate) zijde naar boven gericht. Plasma reinigt ze 1 minuut op hoge vermogensstand ("HI") (230 V, maximaal RF-vermogen 18 W) en een druk van ongeveer 0,5 mbar.
- Gedeeltelijke uitdroging van proteo-LUV's
- Meng 20 μL eiwitvrije LUV's met 20 μL proteo-LUV's die gereconstitueerd bo3 oxidase-ATTO 643 bevatten. Zachtjes vortexen om homogene menging te garanderen.
- Plaats zeven 2 μL druppels van de resulterende 5 mg/mL LUV/proteo-LUV suspensie op het geleidende (ITO-gecoate) oppervlak van elke schuin die voor elektroformatie wordt gebruikt (Figuur 2A). Verdeel de druppels gelijkmatig over het 160,6 mm2 oppervlak, waarbij je ze gescheiden houdt om een uniforme filmvorming te bevorderen.
OPMERKING: Voor andere polymeersystemen kunnen de LUV-concentratie en druppelvolume optimalisatie vereisen (typisch bereik: 5–100 mg/mL LUV's; 0,2–2 μL druppels). - Laat de druppels gedeeltelijk uitdrogen bij kamertemperatuur (∼22 °C) en ∼20% luchtvochtigheid gedurende ongeveer 40 minuten, of totdat er een witte ring vormt aan de rand van de druppel (Figuur 2B).
OPMERKING: Uitdroging hangt af van de luchtvochtigheid. Als de relatieve luchtvochtigheid boven de 40% ligt, verleng dan de uitdrogingstijd indien nodig (tot 20 minuten). Bepaal het eindpunt op basis van het uiterlijk van een witte ring aan de rand van de druppel in plaats van op een vaste tijd. Onder consistente omgevingsomstandigheden (temperatuur en luchtvochtigheid) is de vereiste droogtijd reproduceerbaar. Vermijd overmatige droging, wat zichtbaar is als volledig platte, gelijkmatig witte druppels, omdat dit eiwitneerslag kan veroorzaken.
- Assemblage van de elektroformatiekamer
- Assembleer de elektroformatiekamer door twee ITO-gecoate geleiders (gecoate zijden naar binnen gericht) te sandwichen, gescheiden door een 1,81 mm dikke siliconen afstandhouder met een snede aan één kant, waardoor buffer kan worden toegevoegd of verwijderd tijdens het vullen en verzamelen.
- Vul de kamer met rehydratatiebuffer (1 mM Tris-HCl, pH 7,5; 200 mM sucrose).
Voor pH-gevoelige experimenten voeg je 10 μM pyranine (8-hydroxypyreen-1,3,6-trisulfonzuurtrinatriumzout, HPTS) toe aan de buffer.
- Elektroformatie
- Pas een sinusvormig wisselend elektrisch veld toe met het volgende programma: 50 Hz bij 50, 100, 200, 300, 500, 700 en 900 mV gedurende elk 6 minuten; 50 Hz bij 1,1 V gedurende 2 uur.
OPMERKING: Om de vorming van grotere proteo-GUV's te bevorderen, kan deze stap worden verlengd tot 12 uur, en 4 Hz bij 2 V gedurende 30 minuten voor de detachementstap. Wanneer de buffer 10 μM pyranine bevat, verhoog dan de frequentie tot 500 Hz tijdens de eerste twee spanningsopbouwstappen.
- Pas een sinusvormig wisselend elektrisch veld toe met het volgende programma: 50 Hz bij 50, 100, 200, 300, 500, 700 en 900 mV gedurende elk 6 minuten; 50 Hz bij 1,1 V gedurende 2 uur.
- Collectie GUV's
- Open de kamer voorzichtig met een pincet en verzamel GUV's met FineTip Ultra-Micro Pastette-pipetten (of equivalente laag-afschuif transferpipetten) om mechanische spanning te minimaliseren.
OPMERKING: Vermijd het gebruik van standaard pipetten met laag volume onder de 200 μL, omdat deze grotere GOV's kunnen laten scheuren. Alternatief kunnen standaard tips aan het uiteinde worden afgezaagd om de opening te verbreden, waardoor de afschuiving tijdens het verzamelen wordt verminderd.
- Open de kamer voorzichtig met een pincet en verzamel GUV's met FineTip Ultra-Micro Pastette-pipetten (of equivalente laag-afschuif transferpipetten) om mechanische spanning te minimaliseren.
- Opslag
- Bewaar proteo-GUV's bij 4 °C en gebruik binnen 48 uur om de eiwitactiviteit te behouden.
OPMERKING: Het tempo van activiteitsverlies hangt af van het type en de stabiliteit van het gereconstitueerde membraaneiwit, evenals van de samenstelling van het membraan.
- Bewaar proteo-GUV's bij 4 °C en gebruik binnen 48 uur om de eiwitactiviteit te behouden.
8. Microscopie van eiwitgefunctionaliseerde GUV's
- Microscoopopstelling
- Zet de confocale microscoop aan. Als je het Leica-systeem gebruikt, start dan de LAS X-software. Voor andere microscoopmerken gebruik je de door de fabrikant aanbevolen acquisitiesoftware.
- Selecteer een 63× olie-onderdompelingsobjectief (NA 1.40); pas indien nodig aan op een hogere of lagere vergroting, afhankelijk van de grootte van de GUV.
- Open twee beeldvormingskanalen die overeenkomen met de fluoroforen: Rhodamine Red (membraan) en ATTO 643 (gereconstitueerd eiwit).
OPMERKING: Voor fluoroforen met gedeeltelijk overlappende spectra, selecteer geschikte laserlijnen en smalle detectievensters om spectrale kruisspraak te minimaliseren. Verzamel elk kanaal sequentieel om signaaldoorvloeiing te voorkomen en om nauwkeurige fluorescentiekwantificering te garanderen.
- Sedimentatie van GUV's
- Plaats een press-to-seal siliconen isolator op een schone 1,5 glazen deklaag (0,17 mm dikte).
OPMERKING: Voor rechtopstaande (niet-omgekeerde) microscopen kunnen dikkere glazen glaasjes worden gebruikt. - Pipet 60 μL buffer (1 mM Tris-HCl, pH 7,5; 200 mM glucose) in het midden van de spacer.
- Voeg voorzichtig 20 μL van de GUV-ophanging toe bovenop de buffer.
- Bedek de kamer onmiddellijk met een tweede glazen schuifstuk om verdamping te voorkomen.
- Laat de GUV's ~5 minuten sedimenteren voordat je beelden neemt.
- Plaats een press-to-seal siliconen isolator op een schone 1,5 glazen deklaag (0,17 mm dikte).
- Beeldverwerving
- Focus op de onderkant van de kamer om dwarsdoorsneden van GUV's vast te leggen.
- Verzamel beelden van verschillende GUV's door de kamer door systematisch van linksboven naar rechtsonder te scannen ("slangenpatroon") om een representatieve populatie te verkrijgen (~100 GUV's). Maak een afbeelding van alle blaasjes die tijdens de scan worden aangetroffen zonder preselectie, ongeacht grootte of fluorescentie-intensiteit, om selectiebias te voorkomen en reproduceerbaarheid te waarborgen.
OPMERKING: Vermijd herhaalde beeldvorming van dezelfde GUV om fotobleaching te voorkomen.
- Beeldanalyse
- Kwantificeer de fluorescentieintensiteit van gereconstitueerd ATTO 643-gelabeld eiwit door een polyline langs het membraan van individuele GUV's te tekenen. Bij gebruik van LAS X-software selecteer je Quantify → Line Profile, kies vervolgens de polyline-tool en volg het membraan van elke GUV. Om de gemiddelde fluorescentieintensiteit te verkrijgen, open je Statistiek en noteer je de gemiddelde waarde. Analyseer alleen schone, unilamellaire GUV's; Sluit multivesiculaire blaasjes en aggregerige blaasjes uit de analyse.
OPMERKING: Als metingen op verschillende dagen worden verkregen, moeten fluorescentieintensiteiten worden genormaliseerd op het laservermogen, gemeten onder identieke beeldvormingsinstellingen (golflengte en nominaal vermogen). Om rekening te houden met dagelijkse variaties in laseruitgang wordt de volgende normalisatie toegepast: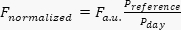 , waarbij Fa.u. de gemeten fluorescentieintensiteit in willekeurige eenheden is, P-referentie de laserkracht is die op de referentiedag wordt gemeten, en de laserkracht die op de dag van verwerving wordt gemeten. Deze correctie gaat uit van een lineaire relatie tussen laservermogen en fluorescentieintensiteit onder niet-verzadigende verlichtingsomstandigheden. In de huidige studie werden alle beelden op dezelfde dag gemaakt, waardoor normalisatie niet nodig was.
- Rapporteer de fluorescentieintensiteit als gemiddeld 100 GDV's met de bijbehorende standaarddeviatie.
- Kwantificeer de fluorescentieintensiteit van gereconstitueerd ATTO 643-gelabeld eiwit door een polyline langs het membraan van individuele GUV's te tekenen. Bij gebruik van LAS X-software selecteer je Quantify → Line Profile, kies vervolgens de polyline-tool en volg het membraan van elke GUV. Om de gemiddelde fluorescentieintensiteit te verkrijgen, open je Statistiek en noteer je de gemiddelde waarde. Analyseer alleen schone, unilamellaire GUV's; Sluit multivesiculaire blaasjes en aggregerige blaasjes uit de analyse.
9. Protonpompanalyse in proteo-GUV's
- Microscoopopstelling
- Zet de confocale microscoop aan en start de juiste acquisitiesoftware (bijv. LAS X voor Leica-systemen).
- Selecteer een 63× olie-onderdompelingsobjectief (NA 1.40). Pas indien nodig aan op een hogere of lagere vergroting, afhankelijk van de grootte van de GUV.
- Configureer drie beeldvormingskanalen die overeenkomen met de fluoroforen. Voor Rhodamine Red (membraanmarker) gebruik een excitatie van 561 nm en een emissiebereik van 570–620 nm. Voor pyranine (een inkapselde pH-gevoelige kleurstof) gebruik excitaties bij 448 nm en 405 nm, en verzamel emissie over 499–551 nm.
OPMERKING: Als er een laser van 458 nm beschikbaar is, gebruik deze dan in plaats van 448 nm om de gedeprotoneerde (basische) vorm van pyranine te exciteren. - Pas laservermogen en detectorversterking aan om pixelverzadiging te voorkomen en fotobleaching te minimaliseren. Houd de acquisitie-instellingen constant gedurende het experiment.
- Sedimentatie van GUV's
- Voeg 280 μL buffer (1 mM Tris-HCl, pH 7,5; 200 mM glucose) toe aan één put van een 8-well gekamerde dia-laag (totaal putvolume: ~874 μL).
OPMERKING: Gebruik niet minder dan 200 μL, omdat volumes onder 200 μL de verdamping en pH-drift verhogen. Haal niet meer dan 400 μL om morsen te voorkomen en comfortabel te pipetteren. Als je een ander kamerformaat gebruikt, pas dan het volume dienovereenkomstig aan. Voor omgekeerde microscopen gebruik je kamerglaasjes die compatibel zijn met een deklaagdijte van #1,5H. - Voeg voorzichtig 20 μL van de bo3-GUV vering toe bovenop de buffer zonder luchtbellen toe te voegen.
OPMERKING: Voor de negatieve controle vervang je de bo 3-GUV-suspensie door een equivalent volume (20 μL) eiwitvrije GUV's van dezelfde lipide/polymeersamenstelling, bereid en gesedimenteerd onder identieke omstandigheden. Deze controle houdt rekening met eventuele niet-specifieke effecten van DTT en Q1 op de pyraninefluorescentieverhouding die onafhankelijk zijn van de activiteit van de oxidase van bo3. - Laat de GUV's ongeveer 5 minuten sedimenteren voordat je beelden maakt.
- Voeg 280 μL buffer (1 mM Tris-HCl, pH 7,5; 200 mM glucose) toe aan één put van een 8-well gekamerde dia-laag (totaal putvolume: ~874 μL).
- Basisverwerving
- Focus op het onderste vlak van de kamer waar de GUV's zijn afgedaald.
- Pas de zoom aan om 3–6 GUV's binnen het gezichtsveld te verkrijgen.
- Noteer de basisfluorescentie in alle kanalen gedurende 5 minuten vóór activatie.
- Activatie van protonpompen
- Maak direct voor gebruik een nieuw DTT–Q₁-mengsel door 4,8 μL van 1 M DTT te mengen met 0,3 μL 80 mM Q₁ in DMSO, en meng vervolgens grondig door vortexen.
- Activeer cytochroom bo3 oxidase door voorzichtig 2,6 μL van het DTT–Q₁-mengsel aan het oppervlak van de oplossing toe te voegen zonder de pipettip in de buffer te plaatsen, wat resulteert in uiteindelijke concentraties van ongeveer 8 mM DTT en 40 μM Q₁ in de kamer.
- Monitor de intravesiculaire pyraninefluorescentie gedurende 30 minuten onder continue opname.
- Analyse van intravesiculaire pyraninefluorescentie
- Definieer voor elke GUV een interessegebied (ROI) binnen het blaassel-lumen. In de LAS X-software ga je naar Quantify → Stack Profile, selecteer je Draw Ellipse en teken je een cirkelvormige ROI binnen elke GUV.
- Om de gemiddelde fluorescentieintensiteit bij 499–551 nm voor beide excitatiegolflengten (448 nm en 405 nm) te bepalen, open je Statistics in de software en noteer je de gemiddelde waarde.
- Bereken de fluorescentieverhouding als R = I448/I405.
- Plot de verhouding over de tijd om kinetische sporen van intravesiculaire pH-verandering te verkrijgen.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
De E. coli cytochroom bo3 oxidase werd tot expressie gebracht uit plasmide pETcyo in E. coli-stam C43 (DE3) ΔcyoABCDE en gezuiverd zoals eerder beschreven29. Gezuiverde bo3-oxidase werd direct gebruikt voor reconstitutie- en activiteitsmetingen, of gelabeld met fluorescerende kleurstoffen, zoals ATTO 643 (deze studie) of andere ATTO-kleurstoffen 1,15.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Polymersomen en polymeer/lipide hybride vesikels vertonen een verbeterde chemische en mechanische stabiliteit ten opzichte van conventionele lipideblaasjes, waardoor ze zeer aantrekkelijk zijn voor toepassingen variërend van geneesmiddelafgifte en biosensing tot nano- en microreactoren en kunstcellen. Hun onderscheidende membraanarchitectuur en biofysische eigenschappen voorkomen echter vaak de directe overdracht van protocollen die geoptimaliseerd zijn voor lipideblaasjes naar polymere-...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs geven geen concurrerende financiële belangen aan.
Dankbetuigingen
Dit onderzoek werd uitgevoerd binnen de Max Planck School Matter to Life, ondersteund door de Dieter Schwarz Stichting in samenwerking met de Max Planck Gesellschaft. We zijn Claudia Bednarz dankbaar voor de isolatie en zuivering van cytochroom bo3 oxidase, en Anne Christin Weinrich voor haar hulp bij de voorbereiding van blaasjes en microscopie.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| ÄKTA pure™ chromatography system | Cytiva | 29018224 | |
| 18:1 Liss Rhod PE | Avanti Research | 810150 | |
| 8 well chambered coverglass | Cellvis | C8-1.5H-N | |
| Amicon Ultra 0.5 mL Centrifugal Filters | Sigma Aldrich | UFC5030 | |
| ATTO 643 NHS ester | ATTO-TEC | AD 643-31 | |
| Bio-Beads SM-2 | Bio-Rad | 1523920 | |
| Cholic acid-Na-salt (sodium cholate) | Serva | 361-09-1 | |
| Coenzyme Q1 | TargetMol | TGM-T19594 | |
| Confocal microscope STELLARIS 5 | Leica Microsystems | 603810 | |
| DTT (Dithiothreitol) | Merck | 10197777001 | |
| Fine Tip Ultra Micro Pastette | Pastette | LW4243 | |
| HPTS (pyranine, 8-Hydroxypyrene-1,3,6-Trisulfonic Acid, Trisodium Salt) | Sigma Aldrich | 6358-69-6 | |
| ITO-coated glass slides (25×75×1.1 mm, ≤20 Ohm/sq.) | pgo | CEC020S | |
| LAS X software | Leica | https://www.leica-microsystems.com/products/microscope-software/p/leica-las-x-ls/ | |
| Mini centrifuge MCF-2360 | LMS | 24572 | |
| Mini-extruder | Avanti Research | 610000 | |
| Oxytherm+P system | Hansatech Instruments | / | |
| Plasma cleaner (benchtop) | Harrick Plasma | PDC-32G-2 | |
| Polycarbonate membranes 0.1 μm | Avanti Research | 610005 | |
| Press-to-seal silicone isolator (round, 20 mm diameter, 1 mm depth) | Grace Bio-Labs | 41161502 | |
| Silicone spacers (round, 24.2 mm outer diameter, 14.3 mm inner diameter, 1.8 mm depth) | laboratory-made, cut from silicone sheet | ||
| Soy PC (95%) | Avanti Research | 441601 | |
| Specord 50 PLUS spectrophotometer | Analytik Jena | 823-0200P-3 | |
| Superdex 200 10/300 GL column (column L × I.D. 30 cm × 10 mm) | Cytiva | 28-9909-44 | |
| Test tube shaker (2800 rpm) | IKA Lab Dancer | 3365000 | |
| Thermomixer comfort 5355 | Eppendorf | 5355000.011 | |
| Xiameter OFX-5329 (PDMS-g-PEO; MW 3000) | Dow Corning | 000000000004109892 | |
| Zetasizer Nano ZS | Malvern Panalytical | ZEN3600 |
Referenties
- Marušič N, et al. Constructing artificial respiratory chain in polymer compartments: Insights into the interplay between bo3 oxidase and the membrane. Proc Natl Acad Sci U S A. 2020;117(26):15006-17.
- Bermudez H, Brannan AK, Hammer DA, Bates FS, Discher DE. Molecular Weight Dependence of Polymersome Membrane Structure, Elasticity, and Stability. Macromolecules. 2002;35(21):8203-8.
- Otrin L, et al. Toward Artificial Mitochondrion: Mimicking Oxidative Phosphorylation in Polymer and Hybrid Membranes. Nano Lett. 2017;17(11):6816-21.
- Otrin L, et al. En route to dynamic life processes by SNARE-mediated fusion of polymer and hybrid membranes. Nat Commun. 2021;12(1):4972.
- Itel F, Najer A, Palivan CG, Meier W. Dynamics of Membrane Proteins within Synthetic Polymer Membranes with Large Hydrophobic Mismatch. Nano Lett. 2015;15(6):3871-8.
- Goers R, et al. Optimized reconstitution of membrane proteins into synthetic membranes. Commun Chem. 2018;1(1):35.
- Nardin C, Thoeni S, Widmer J, Winterhalter M, Meier W. Nanoreactors based on (polymerized) ABA-triblock copolymer vesicles. Chem Commun. 2000;(15):1433-4.
- Einfalt T, et al. Stimuli-Triggered Activity of Nanoreactors by Biomimetic Engineering Polymer Membranes. Nano Lett. 2015;15(11):7596-603.
- Ranquin A, Versées W, Meier W, Steyaert J, Van Gelder P. Therapeutic Nanoreactors: Combining Chemistry and Biology in a Novel Triblock Copolymer Drug Delivery System. Nano Lett. 2005;5(11):2220-4.
- Ihle S, et al. Nanocompartments with a pH release system based on an engineered OmpF channel protein. Soft Matter. 2011;7(2):532-9.
- Kumar M, et al. Highly permeable polymeric membranes based on the incorporation of the functional water channel protein Aquaporin Z. Proc Natl Acad Sci U S A. 2007;104(52):20719-20724.
- Choi HJ, Montemagno CD. Artificial Organelle: ATP Synthesis from Cellular Mimetic Polymersomes. Nano Lett. 2005;5(12):2538-42.
- Khan S,et al. Durable proteo-hybrid vesicles for the extended functional lifetime of membrane proteins in bionanotechnology. Chem Commun. 2016;52(73):11020-3.
- Kleineberg C, et al. Light-Driven ATP Regeneration in Diblock/Grafted Hybrid Vesicles. Chembiochem. 2020;21(15):2149-60.
- Otrin N, et al. Protein-Rich Rafts in Hybrid Polymer/Lipid Giant Unilamellar Vesicles. Biomacromolecules. 2024;25(2):778-91.
- Marušič N, et al. Increased efficiency of charge-mediated fusion in polymer/lipid hybrid membranes. Proc Natl Acad Sci U S A. 2022;119(20):e2122468119.
- Marušič N,et al. Fusion-Induced Growth of Biomimetic Polymersomes: Behavior of Poly(dimethylsiloxane)-Poly(ethylene oxide) Vesicles in Saline Solutions Under High Agitation. Macromol Rapid Commun. 2022;43(5):2100712.
- Rigaud JL, Pitard B, Levy D. Reconstitution of membrane proteins into liposomes: application to energy-transducing membrane proteins. Biochim Biophys Acta. 1995;1231(3):223-46.
- Catania R,et al. Detergent-Free Functionalization of Hybrid Vesicles with Membrane Proteins Using SMALPs. Macromolecules. 2022;55(9):3415-22.
- Otrin L. Bottom-up construction of the artificial mitochondrion [dissertation]. Magdeburg: Otto-von-Guericke-University; 2021.
- Manneville JB, Bassereau P, Ramaswamy S, Prost J. Active membrane fluctuations studied by micropipet aspiration. Phys Rev E Stat Nonlin Soft Matter Phys. 2001;64(2 Pt 1):021908.
- Dezi M, Di Cicco A, Bassereau P, Lévy D. Detergent-mediated incorporation of transmembrane proteins in giant unilamellar vesicles with controlled physiological contents. Proc Natl Acad Sci U S A. 2013;110(18):7276-81.
- Sjoholm J, et al. The lateral distance between a proton pump and ATP synthase determines the ATP-synthesis rate. Sci Rep. 2017;7(1):2926.
- Biner O, Schick T, Muller Y, von Ballmoos C. Delivery of membrane proteins into small and giant unilamellar vesicles by charge-mediated fusion. FEBS Lett. 2016;590(14):2051-62.
- Girard P,et al. A new method for the reconstitution of membrane proteins into giant unilamellar vesicles. Biophys J. 2004;87(1):419-29.
- Nordlund G, Brzezinski P, von Ballmoos C. SNARE-fusion mediated insertion of membrane proteins into native and artificial membranes. Nat Commun. 2014;5(1):4303.
- Otrin N. A Modular Platform for Growth of Hybrid and Polymer Membrane Systems by Vesicle Fusion [dissertation]. Magdeburg: Otto-von-Guericke-University; 2022.
- Otrin L, et al. Artificial Organelles for Energy Regeneration. Adv Biosyst. 2019;3(6):1800323.
- Frericks HL, Zhou DH, Yap LL, Gennis RB, Rienstra CM. Magic-angle spinning solid-state NMR of a 144 kDa membrane protein complex: E. coli cytochrome bo3 oxidase. J Biomol NMR. 2006;36(1):55-71.
- Seneviratne R, et al. A reconstitution method for integral membrane proteins in hybrid lipid-polymer vesicles for enhanced functional durability. Methods. 2018;147:142-9.
- Aimon S,et al. Functional reconstitution of a voltage-gated potassium channel in giant unilamellar vesicles. PLoS One. 2011;6(10):e25529.
- Dolder N, Müller P, von Ballmoos C. Experimental platform for the functional investigation of membrane proteins in giant unilamellar vesicles. Soft Matter. 2022;18(31):5877-93.
- Zhao Z,et al. Super-Resolution Imaging of Highly Curved Membrane Structures in Giant Vesicles Encapsulating Molecular Condensates. AdvMater. 2022;34(4):2106633.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar