Een aanpasbare methode voor de toediening van gesecreteerde immuunproteïnen in de levende muizenhersenen voor de temporele en spatiale karakterisering van neuro-immuuninteracties.
Methodenartikel
Gerichte intracraniële toediening van gesecreteerde immuunmoleculen voor het onderzoek naar neuro-immuuninteracties
In dit artikel
Samenvatting
Samenvatting
Hoewel steeds meer wordt erkend dat uitgescheiden immuunproteïnen de functie van het zenuwstelsel beïnvloeden, blijven er technische barrières bestaan bij het definiëren van hun spatiotemporele dynamiek binnen de complexe omgeving van de hersenen. Microglia, een populatie belangrijke immuuncellen in de hersenen, laten bijvoorbeeld een verscheidenheid aan factoren vrij die interageren met vele diverse cellulaire doelen. Proteïnen afkomstig uit microglia kunnen signaleren naar andere celtypen via mechanismen zoals binding aan oppervlaktereceptoren zonder internalisatie, passief membraantransport, fagocytische opname of endocytose-gemedieerde opname. Hier wordt een methode gepresenteerd voor de lokale afgifte van een uit microglia afkomstig uitgescheiden proteïn om mechanismen van cellulaire interactie en downstream functionele uitkomsten in vivo te ontleden. We beschrijven hoe proteïnemonsters voor afgifte moeten worden voorbereid, hoe stereotactische toediening van proteïnen in doelgebieden van de hersenen moet worden uitgevoerd, en de beste praktijken voor het verzamelen en prepareren van hersenweefsel om fixatiegevoelige proteïnen via immunohistochemie te visualiseren. Deze aanpak biedt een veelzijdig kader voor spatiotemporeel gecontroleerde studies naar neuro-immuuncommunicatie, waardoor mechanistische exploratie mogelijk wordt van hoe immuun-afgeleide proteïnen de neuronale functie en hersenfunctie dynamisch reguleren.
Inleiding
Neuro-immune communicatie, of het moleculaire gesprek tussen het zenuwstelsel en het immuunsysteem, is pas recentelijk vastgesteld als essentieel voor het begrijpen van gezondheid en ziekte. De hersenen, waarvan voorheen werd gedacht dat ze grotendeels beschermd waren tegen de activiteit van het immuunsysteem1,2, worden nu erkend als een gebied dat zeer dynamische immuunniches bevat, waardoor het zenuwstelsel in staat is om immuunsignalen door het hele lichaam zowel te verzenden als te ontvangen3. Deze robuuste, bidirectionele interactie wordt meestal gemedieerd door immuuncompetente cellen die leven in de hersenen of op de interfaces van het zenuwstelsel, zoals de plexus choroideus, de meninges en de perivasculaire ruimtes4. In het hersenparenchym zelf wordt immuunsignalering echter primair gemedieerd door microglia, de langlevende, weefselresidente macrofagen die de hersenen als eerste bezetten tijdens de embryonale ontwikkeling. Hoewel ze vaak experimenteel worden onderzocht met speciale aandacht voor hun fagocytische functies, interageren microglia ook met zowel hun directe omgeving als over lange afstanden door de afgifte van een grote verscheidenheid aan immuunfactoren5.
Het modelleren van complexe, multifactoriële condities zoals infecties, letsels en ziekten in vivo, hoewel nuttig voor een holistisch begrip van het zenuwstelsel onder stress, leidt tot een cascade van factoren met wijdverspreide en diverse gevolgen die moeilijk te ontwarren kunnen zijn. Bovendien blijft het, gezien de hoge heterogeniteit tussen cellen in verschillende hersengebieden, een uitdaging om de causale afgifte en de daarmee geassocieerde effecten van individuele factoren vast te stellen. Hoewel instrumenten zoals lentivirale en adeno-geassocieerde virale vectoren, die overexpressie van specifieke factoren mogelijk maken na een locatiepreciese infectie, onderzoek hebben gefaciliteerd naar de rollen van uitgescheiden factoren uit andere hersencellen, zoals neuronen en astrocyten in diverse contexten, blijven microglia tot nu toe moeilijk op deze manier specifiek en robuust te moduleren6. Daarom biedt het vermogen om microglia-afgeleide signaleringsmoleculen naar een gedefinieerde locatie in de hersenen te brengen een nuttige methode om hun precieze rollen en gevolgen in verschillende contexten te scheiden.
Het doel van deze methode is om microglia-afgeleide factoren spatiotemporeel af te leveren in de hersenen van een levende muis, om zo nader onderzoek te kunnen doen naar de functionele impact van een eiwit of molecuul van belang. Bovendien is deze intracraniële toedieningsmethode aanpasbaar aan veel andere contexten en vraagstellingen, zoals via de co-toediening van meerdere factoren, zoals interagerende immuunfactoren of inhibitoren, of het onderzoek naar weefselresponsen over een relevant tijdsverloop. Hoewel dit protocol de weefselafname en preparatie voor immunohistochemische eindpunten beschrijft, kunnen diverse andere herseneindpunten worden gecombineerd met deze toedieningsmethode, zoals het afnemen van vers bevroren weefselstansen uit een hersengebied van belang voor qPCR of eiwitkwantificatie via Western blot of ELISA, of het uitvoeren van elektrofysiologische registraties van neuronale activiteit in een geïnjecteerd hersengebied.
Protocol
Alle procedures met dieren worden uitgevoerd in overeenstemming met de National Institutes of Health Guide for the Care and Use of Laboratory Animals en volgens protocollen die zijn goedgekeurd door de Institutional Animal Care and Use Committee (IACUC) van de onderzoeksinstelling. Alle hier beschreven procedures zijn beoordeeld en goedgekeurd door de IACUC van Duke University. De gebruikte reagentia en apparatuur staan vermeld in de Tabel met materialen.
1. (Optioneel) Bereiding van het injectaat met het label van interesse
- Koop, isoleer of creëer een gezuiverde versie van het immuunproteïne of molecuul van belang (zie Discussie voor richtlijnen over proteinoptimalisatie en aanbevelingen voor validatie).
- Bepaal indien nodig de beste labelingsstrategie op basis van de chemische structuur van het proteïne. Vermijd bijvoorbeeld conjugatie op specifieke domeinen of regio's van uw proteïne als deze vereist zijn voor de functie. De validatie van de normale proteïnefunctie na de labeling moet worden uitgevoerd.
OPMERKING: Voor gezuiverde proteïnen omvatten gangbare chemische labelingsbenaderingen conjugatie aan thiolgroepen, meestal op cysteïneresten (maleïmide- of iodoacetamidekleurstoffen) of aan aminegroepen, meestal op lysineresten (N-hydroxysuccinimide (NHS)-ester- of isothiocyanaatkleurstoffen), volgens de instructies van de fabrikant. Kits kunnen ook worden gekocht bij standaardleveranciers om conjugatie uit te voeren.- Zorg ervoor dat alle vrije kleurstof wordt verwijderd, bijvoorbeeld door proteïnen en kleurstof door een kolom van geschikte grootte te centrifugeren om proteïnen op te vangen en doorstroming van ongebonden kleurstof mogelijk te maken vóór gebruik.
- Als alternatief kunnen proteïnen van belang genetisch worden getagd voor detectie, in de gewenste cellen worden tot expressie gebracht en vervolgens worden gezuiverd. De tag kan direct aan het proteïne worden gefuseerd of via een flexibele linker worden verbonden, waarbij gangbare opties fluorescente proteïnen zijn (bijv. eGFP, tdTomato, mCherry) en zelflabelende tags (bijv. HaloTag, SNAP-tag).
- Verdeel proteïnen in aliquots om vries-dooi-cycli te vermijden die schade kunnen veroorzaken. Voor de beste resultaten dient de normale proteïnefunctie voor elk aantal vries-dooi-cycli te worden gevalideerd vóór gebruik in vivo. Bewaren bij -80 °C.
OPMERKING: Niet-gelabeld proteïne kan voldoende zijn in gevallen waarin differentiatie tussen endogeen en exogeen proteïne niet vereist is (bijv. injectie in een knockout-knaagdiermodel). Empirische testen moeten worden uitgevoerd om de experimentele omstandigheden te optimaliseren.
2. Voorbereiding van de apparatuur voor de chirurgische procedure
- Verzamel de volgende chirurgische instrumenten in een autoclaafbestendige houder met een stoomindicatorstrip: scalpelhouder, pincet, kleine schaar, hemostat, boorpunt (1,35 mm) en een chirurgisch afdekdoek voor aseptische techniek uitsluitend voor de tips. Steriliseer de chirurgische instrumenten via autoclaaf bij 121 °C bij 15–20 psi gedurende 30 min.
- Aanvullende benodigde materialen: steriele wattenstaafjes, povidonjodiumoplossing, 70% ethanol, 0,9% zoutoplossing, isofluraan, getrokken glazen micropipetten, steriele scalpellamellen, onthaaringscrème, oogverzacher, weefsellijm of chirurgische hechtdraden, warmtemat, weegschaal, bereide medicatie en insulinespuiten, en een chirurgisch logboek.
- Om getrokken glazen micropipetten voor te bereiden, selecteert u een glazen capillair met een buitendiameter die in de injector past, gewoonlijk rond de 1,0 mm, en een binnendiameter tussen 0,5 mm en 0,8 mm. Plaats dit in een pipetten trekker en trek deze vervolgens met instellingen die resulteren in een smalle maar sterke taps toelopende tip (deze instellingen zijn afhankelijk van het specifieke instrument en vereisen individuele optimalisatie).
OPMERKING: Vaak helpt een lagere temperatuur om een lange, flexibele tip te voorkomen die kan buigen bij het binnendringen van het parenchym, en een lage of matige trekkracht helpt om te voorkomen dat de tipopening te nauw wordt, wat kan leiden tot verstopping of injectieweerstand. Gebruik een dissectiemicroscoop om alle getrokken pipettips te inspecteren en gebruik een fijn pincet om de tipopening voorzichtig af te knippen, zodat er een binnendiameteropening van ongeveer 20 µm overblijft. Als u een afschuiningsinstrument gebruikt, hanteer dan een hoek van minder dan 35°. - Breng de geautoclaveerde instrumenten, aanvullende materialen en het te injecteren eiwit op ijs naar de operatieruimte (Figuur 1A). Pak de geautoclaveerde instrumenten voorzichtig uit op een chirurgische handdoek en plaats de tips van alle instrumenten in het centrum van het aangewezen steriele veld (Figuur 1B,C). Gebruik de hemostat om de boorpunt in het centrum van het veld te plaatsen. Bevestig een steriele scalpellamel aan de houder en houd het lemmet in het steriele veld.
- Warm de warmtemat vooraf op tot 37 °C en schakel de kralensterilisator in als er meerdere operaties worden uitgevoerd.
- Vul de micropipettip achteraf aan met minerale olie met behulp van een fijnmazige naald, waarbij u er zeker van bent dat er geen luchtbellen in de gehele lengte van de glazen pipet zitten. Plaats de glazen pipet op de micro-injector en spuit voorzichtig het volume eiwit uit dat u zult laden. Laad het eiwit van belang in een volume gebaseerd op gepubliceerde aanbevelingen7 in de injector en zet de injector vervolgens opzij.
3. Stereotactische chirurgische procedure
OPMERKING: Alle chirurgische ingrepen werden uitgevoerd in een zeer goed geventileerde operatiekamer, waarbij al het personeel persoonlijke beschermingsmiddelen droeg, bestaande uit handschoenen, mondmaskers, haarkapjes, schoenovertrekkers en operatiejassen. Blootstelling aan isofluraangas vormt een gezondheidsrisico en vereist daarom een afzuigsysteem, zoals canisters met actieve kool, die voor en na het gebruik van isofluraan gewogen moeten worden. Zorg ervoor dat alle apparatuur, zoals de anesthesieverdamper, ventilatiesystemen en afzuigapparatuur, correct is gecertificeerd en gekalibreerd vóór gebruik.
- Zorg ervoor dat de anesthesie-verdamper is gevuld met het juiste volume isofluraan en stel de zuurstofstroom in op een snelheid van 1 L/min. Noteer het gewicht van de muis voordat deze in een isofluraankamer wordt geplaatst die is ingesteld op een toedieningssnelheid van 3,5%–4%. Noteer het tijdstip van het begin van de operatie.
- Monitor het dier op een verminderde ademhalingsfrequentie en bevestig vervolgens de volledige anesthesie door de afwezigheid van de teenknijpreflex. Verplaats het dier, zodra het volledig is geanestheseerd, naar het verwarmde warmtekussen op het stereotaxisch frame om een constante stroom van 2% isofluraan bij 1 L/min via een neusconus te ontvangen. Pas de isofluraanstroom naar behoefte aan op basis van de ademhalingsfrequentie van het dier.
- Breng voorzichtig een royale laag oogsmeermiddel aan in elk oog. Controleer het smeermiddel gedurende de hele operatie om ervoor te zorgen dat de ogen volledig bedekt blijven. Breng indien nodig opnieuw aan.
- Breng met een steriele wattenstaaf ontharingscrème aan op de bovenkant van de kop en masseer dit in de vacht. Verwijder na het aanbrengen van de ontharingscrème zowel de crème als de kopbehaaring met wattenstaven gedoopt in 0,9% saline. Herhaal het aanbrengen en verwijderen van de ontharingscrème totdat alle haar aan de bovenkant van de kop is verwijderd.
OPMERKING: Pas op dat u geen ontharingscrème aanbrengt op onbedekte huid waar het haar al is verwijderd, en laat de crème niet langer dan ongeveer 3 min in de vacht intrekken. Langdurige blootstelling aan ontharingscrème kan huidverbrandingen veroorzaken. - Dien een passende hoeveelheid preoperatieve analgesie toe op basis van het gewicht van het dier. De exacte dosis, toedieningsroute en timing van het analgeticum moeten worden beoordeeld en goedgekeurd door de IACUC. In deze studie werd 4 mg/kg meloxicam via een subcutane injectie toegediend aan het begin van de operatie.
- Zet de kop van het dier stevig vast tussen de oorstaven, waarbij de schedel zo vlak en gelijk mogelijk wordt gehouden. Druk voorzichtig op de kop van het dier om te bevestigen dat er geen beweging is. Als de kop zakt of beweegt, fixeer de oorstaven dan opnieuw totdat dit niet meer gebeurt.
- Breng met steriele wattenstaven betadine aan op de kop met een cirkelvormige beweging van binnen naar buiten, en herhaal dit vervolgens met 70% ethanol.
- Herhaal de applicatie van povidon-jodium en breng daarna 2 keer 70% ethanol aan, voor een totaal van 3 applicaties.
OPMERKING: Dit wordt nu beschouwd als een steriel veld, en alleen gesteriliseerde instrumenten zijn toegestaan in dit gebied. - Maak met een scalpel in één vloeiende beweging een verticale incisie vanaf ongeveer net boven de bovenkant van de ogen tot ongeveer halverwege tussen de oren. Gebruik een steriele wattenstaaf om de huid voorzichtig te scheiden en de schedel bloot te leggen. Bevestig dat u zowel het bregma als het lambda kunt visualiseren en voer vervolgens het scalpelmes zorgvuldig af in de daarvoor bestemde container voor scherpe voorwerpen.
- Gebruik gekartelde pincetten om de steriele boorbeitel aan de boor te bevestigen. Bevestig de boor in de arm van het stereotaxisch frame en positioneer de boor boven het midden van het bregma, net rakend aan de schedel. Stel de Z-positie op het stereotaxisch frame in op nul.
- Voer de volgende kwaliteitscontrole uit voor een correcte positionering van de kop:
- Verplaats na het nullen bij het bregma de boorbeitel naar het lambda, waarbij de Z-positie opnieuw zo wordt ingesteld dat deze net het oppervlak van de schedel raakt. Noteer de Z-positie bij het lambda.
- Beweeg de boorbeitel weer omhoog en vervolgens -2,1 mm in de Y-positie, wat ongeveer halverwege het bregma en het lambda moet zijn. Beweeg de X-positie -1,5 mm en +1,5 mm naar beide zijden en noteer opnieuw de Z-positie op beide locaties wanneer deze net de schedel raakt.
- Zorg ervoor dat elke genoteerde Z-positie <0,2 mm is. Pas indien nodig aan.
- Stel de coördinaten opnieuw in op nul bij het bregma en verplaats vervolgens de arm van het stereotaxisch frame naar de gewenste (X,Y) coördinaten.
OPMERKING: Gepubliceerde stereotaxische coördinatenatlassen voor muizen gebruiken vaak referentiemuizen met een normaal gewicht voor jonge volwassenen (~28 g). Grotere of kleinere muizen passen mogelijk niet perfect bij deze referentiecoördinaten. Het wordt aanbevolen om pilot-injecties met een kleurstof uit te voeren om nauwkeurige coördinaten te bevestigen vóór de experimentele toediening van het eiwit. Om coördinaten aan te passen, kan men overwegen een bregma-lambda correctieratio te gebruiken, waarbij de gemeten afstand in mm van bregma naar lambda bij de muis wordt vermenigvuldigd met de door de referentieatlas aanbevolen coördinaat, waarna dit resultaat wordt gedeeld door de bregma-lambda afstand in de referentieatlas als startpunt. - Zet de boor aan en laat de arm langzaam zakken in de Z-dimensie tot contact met de schedel is gemaakt. Boor voorzichtig door de schedel, waarbij u er op let dat u het onderliggende hersenweefsel niet raakt of beschadigt. Het oppervlak van de hersenen zal glanzend en vochtig verschijnen zodra het gat correct is geboord.
OPMERKING: Intermitterend boren en een lagere boorsnelheid (1000 rpm) helpen het risico op hitte door overmatige wrijving te verminderen; het aanbrengen van een steriele salineoplossing tijdens of na het boren vermindert de aerosolisatie van botstof. Het gebruik van PBM (mondmasker, oogbescherming) is belangrijk om risico's voor de experimentator te vermijden. - Herhaal stap 3.12 indien nodig als er meerdere injectieplaatsen worden gebruikt.
- Verwijder de boor uit de arm van het stereotaxisch frame. Als er meer dan één operatie wordt uitgevoerd, gebruik dan de steriele, gekartelde pincetten om de boorbeitel uit de boor te verwijderen en deze in de kralensterilisator te plaatsen. Verwijder de boorbeitel na 10 s uit de kralen en plaats deze in het steriele veld op de operatiedoek.
- Doop een steriele wattenstaaf in 0,9% saline en gebruik deze om de blootgestelde schedel te bevochtigen en eventueel door het boren ontstaan stof af te vegen. Controleer het oogsmeermiddel van het dier en breng indien nodig meer aan.
4. Injectie van het eiwit van belang en chirurgisch herstel
- Bevestig de gevulde injector in de stereotaxische arm. Nul opnieuw af bij bregma en stel de gewenste (X,Y) coördinaten in. Laat de injectorpunt door het geboorde gat in de schedel zakken tot deze net op het oppervlak van de hersenen ligt, onder de schedel. Nul het Z-vlak.
- Voer de injectorpunt zeer langzaam in tot net voorbij de gewenste Z-coördinaat (een extra ~-0,2 mm) en breng deze vervolgens terug naar de juiste coördinaat.
- Injecteer het gewenste eiwit langzaam, met een snelheid van maximaal 500 nL/min. Noteer het tijdstip van injectie.
OPMERKING: Overweeg zorgvuldig de injectievolumes om de gewenste ruimtelijke targeting te bereiken, terwijl weefselletsel en schade worden vermeden. Er moeten empirische tests worden uitgevoerd om het volume en de toedieningssnelheid per interessegebied te optimaliseren (zie Discussie voor verdere details). - Om terugstroming van het injectaat te voorkomen, dient de injector na afloop van de injectie nog 5–10 min op zijn plaats te blijven.
- Trek de injector langzaam weer uit de hersenen, gedurende 1–2 min.
- Herhaal stappen 4.1–4.5 indien er meerdere injecties worden uitgevoerd.
- Verwijder de injector uit de stereotax na voltooiing.
- Gebruik een steriele wattenstaaf gedoopt in zoutoplossing om de chirurgische incisieplaats te rehydreren. Breng bupivacaïne of een ander voorkeurslokaal anestheticum topisch aan op de huid.
- Gebruik steriele pincetten om de incisieplaats te sluiten en breng weefsellijm aan (of andere voorkeursmethoden, zoals hechtingen of wondnietjes) om de wond te verzegelen.
OPMERKING: Zorg ervoor dat er geen weefsellijm in de buurt van de ogen van het dier of op andere huid komt dan de incisie zelf. Men kan een steriele pipetpunt en pipet gebruiken om de weefsellijm gecontroleerder aan te brengen dan met de door de fabrikant meegeleverde applicatoren. - Maak de oorstaven en neuskegel los en plaats het dier in een verwarmde, schone kooi om te herstellen. Noteer het tijdstip waarop het dier uit de isofluraan-anesthesie wordt gehaald.
- Monitor het dier en noteer het tijdstip waarop het dier voor het eerst staand wordt waargenomen. Zodra het dier gedurende ten minste 30 min volledig mobiel is, kan het dier worden teruggeplaatst in een schone thuiskooi met aanvullende zorg, zoals hydrogel en gerehydrateerd gemalen voer.
OPMERKING: Tenzij er acuut (binnen 24 u) weefsel wordt verzameld van het herstelde dier, moet het dier gedurende de eerste week na de operatie één keer per dag worden gewogen en gemonitord om eventuele ongewenste reacties en normale wondgenezing te beoordelen en een gezond herstel te bevestigen. Postoperatieve analgetica moeten worden toegediend volgens protocollen die zijn beoordeeld en goedgekeurd door de IACUC; 4 mg/kg meloxicam werd subcutaan toegediend elke 24 u gedurende de eerste 3 dagen na de operatie. Alle observaties moeten in een logboek worden genoteerd. Als wordt waargenomen dat een dier ziektegedrag vertoont, zoals verminderde mobiliteit, gewichtsverlies van >15% van het gewicht vóór de operatie, of andere tekenen van een slechte gezondheid, moet er contact worden opgenomen met een dierenarts voor overleg, of moet het dier humaan worden geofferd en uit de studie worden verwijderd.
5. Voorbereiding van weefsel voor de immunohistochemische procedure
- Verzamel de volgende materialen: 1x PBS, pincet, een klein schaartje, een spuit van 30 mL of een perfusiepomp, een vlindernaald van 26 gauge, twee conische buizen van 15 mL, 4% paraformaldehyde (PFA) in PBS, drie kleine weegbakjes (om PFA van het weefsel te wassen), 30% sucrose in PBS.
OPMERKING: PFA is carcinogeen en stoot toxische dampen uit die een speciale behandeling en afvoer vereisen. Alle bereiding, het gebruik en de afvoer van PFA moeten worden uitgevoerd in een chemische zuurkast of een biosafety-kast. Alle PFA-afvalstoffen, inclusief zowel vloeibaar afval als vaste stoffen die in contact zijn gekomen met PFA (bijv. pipetpunten, buisjes, weegbakjes, etc.), moeten worden geplaatst in containers voor gevaarlijk afval, zoals voorgeschreven door de instelling waar het werk wordt uitgevoerd. - Volg de institutionele richtlijnen voor euthanasieprocedures. Zodra dit is bevestigd, verplaats het dier naar een tray of emmer en open de buikholte van het dier met behulp van een pincet en een schaartje om het hart bloot te leggen.
- Perfuseer het dier transcardiaal met koude 1x PBS met behulp van een pomp of handmatig met een spuit van 30 mL.
OPMERKING: De tijd tussen de offerdatum en de perfusie moet zo kort mogelijk zijn om stolling te voorkomen; daarom moet dit één voor één worden uitgevoerd als er weefsel van meerdere muizen wordt verzameld. - Verwijder de hele hersenen uit de schedel en breng deze over in een conische buis van 15 mL met 4% PFA-oplossing voor maximaal 2 u. Noteer het tijdstip waarop elke hersenmassa in PFA is geplaatst om te voorkomen dat het weefsel overgefixeerd raakt.
OPMERKING: De optimalisatie van weefselfixatie moet empirisch worden getest voor de doelen van interesse. Zo zijn interacties van C1q met neuronale ribonucleoproteïnecomplexen gevoelig voor overfixatie8. Raadpleeg de Discussie voor meer details over het selecteren van een geschikte fixatiemethode. - Voer na een passende fixatieduur van het weefsel drie wasbeurten in PBS uit om residuele PFA uit het weefsel te verwijderen.
- Breng de hersenen over naar een conische buis van 15 mL met 30% sucrose in PBS-oplossing en bewaar deze bij 4 °C totdat de hersenen naar de bodem zinken. Gemiddeld duurt dit 1–3 dagen.
- Verzamel voor het inbedden van gefixeerde hersenen de volgende materialen: 30% sucrose in PBS, vriesinbeddingsmedium, wegwerpvriesvormen van passende grootte (zoals 22 mm x 22 mm), een scheermesje, pincet, serologische pipet en punten.
- Meng het vriesinbeddingsmedium en de 30% sucrose-oplossing in een verhouding van 1:1 om de inbeddingsoplossing te maken. Bij gebruik van 22 mm x 22 mm vormen is ongeveer 5 mL inbeddingsoplossing per vorm nodig. Vortex goed om de verschillende viscositeiten te mengen.
- Gebruik voor sagittale hersendoorsneden een scheermesje om de hersenen langs de middellijn door te snijden (Figuur 2A). Label elke weefselvorm met monstergegevens, inclusief de hemisfeer. Hemisferen kunnen in individuele vormen worden geplaatst of samen worden gemonteerd, afhankelijk van de voorkeur, met de middellijn naar de bodem van de vorm gericht (Figuur 2B).
- Voeg een passende hoeveelheid inbeddingsoplossing toe om het hersenweefsel te omringen en volledig onder te dompelen. Laat de gevulde vormen 1 u bij kamertemperatuur staan.
OPMERKING: Het is geen probleem als de inbeddingsoplossing nog erg belucht is door het vortexen. De incubatieperiode van 1 u geeft de bellen de tijd om te verdwijnen. - Verzamel droogijs en plaats een plat metalen rek of plaat bovenop het droogijs om een vlak oppervlak voor het vriezen te creëren.
- Plaats elke gevulde vorm voorzichtig zo plat mogelijk op het droogijs. Gebruik een pincet na het verplaatsen van de vormen maar voordat het vriezen begint om te controleren of de hersenen nog correct gepositioneerd zijn. Zodra de inbeddingsoplossing volledig opaak is geworden, is deze hard bevroren en kunnen de ingebedde weefsels worden verplaatst naar -80 °C totdat ze klaar zijn voor immunohistochemie (Figuur 2C).
- Gebruik een cryostaat (kamertemperatuur: -20 tot -25 °C, koptemperatuur: -15 tot -18 °C) om sagittale coupes van 15–40 µm op geladen objectglazen te verzamelen, waarbij voldoende ruimte tussen de coupes moet blijven om een barrière met een pappen kunnen aan te brengen. Drie sagittale coupes kunnen met voldoende tussenruimte op een enkel objectglas worden geplaatst.
OPMERKING: Bij het visualiseren van een gevoelig eiwit, of een eiwit waarvan de gevoeligheid onbekend is, verzamelt u alleen de coupes die nodig zijn voor een immunohistochemisch experiment en voert u dit op dezelfde dag uit. Ingebed weefsel kan worden bewaard en opnieuw worden ingevroren bij -80 °C voor toekomstige experimenten. Alternatief kunnen objectglazen met gesneden weefsel worden bewaard in objectglazenbakjes bij -80 °C.
6. Het uitvoeren van immunohistochemie voor het geïnjecteerde eiwit
- Verzamel materialen voor immunohistochemie: 1x TBS, pap pen, saponine, runderserumalbumine (BSA), primaire antilichamen naar keuze, secundaire antilichamen, Sudan Black B-gebaseerde autofluorescentie-quencher, 70% ethanol, monteermedium met DAPI, dekglasplaatjes, nagellak.
OPMERKING: Commercieel verkrijgbare autofluorescentie-quenchingoplossingen bevatten vaak dimethylformamide (DMF), wat voorzichtig gebruik en verwijdering vereist. Hanteer dit niet zonder handschoenen en verzamel alle gebruikte oplossing in een container voor organisch afval volgens de richtlijnen van de instelling waar het werk wordt uitgevoerd. - Gebruik een transferpipet om 1x TBS aan te brengen op de weefselcoupes op de objectglasplaat voor een wasbeurt van 10 min.
- Zuig de 1x TBS-wasoplossing weg en gebruik vervolgens een pap pen om een hydrofobe barrière rond elke weefselcoupe aan te brengen.
OPMERKING: Door dit na de eerste 1x TBS-wasbeurt te doen, wordt geholpen bij het verwijderen van overtollige inbeddingsoplossing die aan de plaatjes kan kleven en de barrière minder effectief kan maken. Gebruik een task wipe om overtollige oplossing te verwijderen voordat de barrière wordt aangebracht. Zorg er echter voor dat gerehydrateerd weefsel niet uitdroogt. - Herhaal de 1x TBS-wasbeurt van 10 min twee keer, voor een totaal van 3 wasbeurten.
- Bereid permeabilisatiebuffer voor: voeg 0,1% saponine toe aan 1x TBS. Gebruik binnen 2 weken na bereiding. Breng ~100 µL aan op elke coupe en incubeer 10 min bij kamertemperatuur.
- Bereid blokkeringsbuffer voor: voeg 0,1% saponine en 1% BSA toe aan 1x TBS. Een blokkeringsbuffer zal daarnaast worden gebruikt voor de primaire en secundaire oplossingen, dus maak extra en bewaar dit bij 4 °C. Gebruik binnen 2 weken na bereiding. Zuig de permeabilisatiebuffer weg en breng ~100 µL blokkeringsbuffer aan op elke coupe. Incubeer 1 u bij kamertemperatuur.
- Bereid primaire oplossing voor: voeg primaire antilichamen toe aan de blokkeringsbuffer. Begin met een concentratie van 1:500 van het primaire antilichaam en pas dit aan op basis van de resultaten. Zuig de blokkeringsbuffer weg en breng ~100 µL primaire oplossing aan op elke coupe.
OPMERKING: Om het endogene fluorescentiesignaal van een doeleitwit te versterken, kan amplificatie met een primair antilichaam tegen de tag (bijv. anti-GFP-antilichaam) worden uitgevoerd. - Bewaar de plaatjes overnacht in de primaire oplossing bij 4 °C.
OPMERKING: Om verdamping overnacht te voorkomen, moet er een ruime hoeveelheid primaire oplossing op elke coupe aanwezig zijn en moet er extra vochtigheid worden toegevoegd aan de bewaarplaats van de plaatjes. - Verwijder de primaire oplossing door drie keer te wassen in 1x TBS gedurende 10 min bij kamertemperatuur.
- Bereid secundaire oplossing voor: voeg secundaire antilichamen toe aan de blokkeringsbufferoplossing. Begin met een concentratie van 1:200 van het secundaire antilichaam en pas dit naar behoefte aan. Breng ~100 µL oplossing aan op elke weefselcoupe en incubeer 1 u bij kamertemperatuur, afgedekt om blootstelling aan licht te voorkomen.
OPMERKING: In deze stap moeten de plaatjes beschermd blijven tegen licht. - Verwijder de secundaire oplossing door te wassen met 1x TBS gedurende 10 min bij kamertemperatuur.
- Bereid de autofluorescence-quenchingoplossing vers volgens de instructies van de fabrikant. Bereid een 1x werkoplossing door de 20x quenchingoplossing te verdunnen in 70% ethanol van moleculaire kwaliteit.
- Zuig per plaatje de 1x TBS weg en breng de 1x quenchingoplossing aan. Roteer het plaatje voorzichtig gedurende 20–30 s, zodat de oplossing over de weefselcoupes kan bewegen.
- Giet de quenchingoplossing in een afvalcontainer, breng vervolgens met een transferpipet TBS aan op elke coupe, giet de TBS in de afvalcontainer en herhaal de TBS-wasbeurten snel totdat de TBS helder is (meestal is 2–3 keer voldoende).
- Breng 1x TBS aan op de coupe om uitdroging te voorkomen voordat de stappen voor de quenchingoplossing voor elk plaatje worden herhaald.
- Zuig per plaatje de TBS grondig weg en breng vervolgens ten minste één druppel monteermedium met DAPI aan op elke weefselcoupe. Plaats een dekglasplaatje op het objectglas en verzegel de randen van het dekglas met nagellak om verdamping van het monteermedium of verschuiving van het dekglas te voorkomen. Herhaal dit bij alle plaatjes.
- Bewaar de plaatjes bij -20 °C voor langdurige opslag als er niet onmiddellijk wordt geïmageerd.
Resultaten
C1q is een groot (~450 kD) eiwit dat sterk tot expressie komt in het hele lichaam en waarvan de functies binnen het aangeboren immuunsysteem als een sleutellid van de klassieke complementroute goed gedefinieerd zijn. De functionele rollen van C1q in de hersenen worden echter nog steeds onderzocht. C1q in de hersenen wordt primair geproduceerd door en vrijgegeven vanuit microglia, de residente immuuncelpopulatie van de hersenen9. De rol van C1q bij processen zoals synaptische eliminatie tijdens de normale hersenontwikkeling, leren en geheugen, en in ziektecontexten is herhaaldelijk aangetoond10,11,12,13,14. Er is ook waargenomen dat C1q zich ophoopt in of direct grenzend aan neuronale structuren naarmate de hersenen verouderen, zowel bij knaagdieren als bij niet-menselijke primaten9,15,16. Ons lab is geïnteresseerd in de functionele gevolgen van C1q-accumulatie in de hersenen tijdens veroudering. Dit onderzoek ontdekte dat C1q interacteert met neuronale intracellulaire eiwitten bij volwassen en verouderende knaagdieren, waaronder RNA-bindende eiwitten8. Omdat eerder is aangetoond dat T-cellen C1q internaliseren dat afkomstig is van andere celtypen17, hebben we bepaald of neuronen ook in staat zijn om exogeen C1q in vivo te internaliseren.
In deze studie werden eerst unilaterale intracerebroventriculaire (ICV) injecties van 2 µL C1q-eiwit uitgevoerd bij mannelijke muizen van 3 maanden oud. Omdat C1q tot expressie komt in het volwassen brein van het wild-type, hebben we twee benaderingen gebruikt: ten eerste werd C1q-eiwit geïnjecteerd in een C1q -/- (knock-out) muis, en ten tweede werd C1q fluorescent gelabeld via 594-maleïmide-conjugatie om onderscheid te kunnen maken tussen endogeen en exogeen C1q-eiwit in een C1q +/+ (wild-type) dier. Het eiwit werd toegediend in een concentratie van 1 mg/mL, gesuspendeerd in een bufferoplossing van 10 mM HEPES, 300 mM NaCl, pH 7,2. De volgende stereotaxische coördinaten werden gebruikt voor een ICV-injectie in de linkerhemisfeer: X = +1,0 mm, Y = -0,4 mm, Z = -2,5 mm, en het volume werd geïnjecteerd met een snelheid van 500 nL/min. Om terugstroom te verminderen, bleef de getrokken glazen naald die voor de injectie werd gebruikt nog 5 min op zijn plaats nadat de injectie was gestopt voordat deze werd verwijderd. Het weefsel werd 1 u na de injectie verzameld en verwerkt voor immunohistochemische analyse in sagittale coupes. Een succesvolle injectie moet resulteren in gelokaliseerde fluorescentie in het stereotaxisch getargete gebied.
Ten eerste hebben we bij C1q -/- muizen 30 µm sagittale coupes van het linker (Figuur 3A) en rechter (Figuur 3B) hemisfeer gefotografeerd na de volledige immunohistochemische procedure (Stappen 6.1–6.17). Een anti-NeuN antilichaam werd gebruikt voor de visualisatie van neuronale soma's (cyaan), en een anti-C1q antilichaam (rood) voor de visualisatie van niet-gelabeld C1q dat 1 u vooraf in het linker ventrikel was geïnjecteerd. Er is overvloedig C1q waarneembaar in het linker hemisfeer in het periventriculaire parenchym, en een hoge colokalisatie tussen neuronale cellichamen en C1q in de hippocampus CA3 (Figuur 3A), vergelijkbaar met wat we observeren in een wild-type muis met endogene C1q-expressie. Zoals verwacht is geïnjecteerd C1q 1 u na injectie niet waarneembaar rond de ventrikels (of elders in het parenchym) in het contralaterale hemisfeer (Figuur 3B). Vervolgens zijn hersenen van C1q +/+ wild-type (C57BL/6J) muizen die ICV-geïnjecteerd waren met C1q-594 gefotografeerd. Hierbij werd bevestigd dat C1q-594 (magenta) gevisualiseerd kon worden in 30 µm sagittale coupes met enkel autofluorescentie-quenching en dekglasplakken met DAPI (blauw) (Stappen 6.12–6.17). In het linker (geïnjecteerde) hemisfeer is fluorescent gelabeld geïnjecteerd C1q (magenta) waarneembaar in dezelfde periventriculaire distributie (Figuur 3C).
Om neuronale colokalisatie te bevestigen, werd een secundair experiment uitgevoerd met twee 2 maanden oude mannelijke C1q -/- muizen. In de ene hemisfeer kregen de muizen een ICV-injectie van 2 µL C1q-594, en in de andere hemisfeer kregen de muizen 2 µL hitte-geïnactiveerd (HI) C1q-594. Hitte-inactivatie werd uitgevoerd na 594-maleïmide-conjugatie, waarbij de helft van het geprepareerde eiwit 30 min lang in een heatblock op 56 °C werd geplaatst. Hitte-inactivatie is eerder aangetoond om de natuurlijke C1q-eiwitstructuur te veranderen en de activatie te verstoren18. Normaal, natief C1q bij een concentratie van 200 µg/mL in suspensiebuffer (50 mM HEPES, 150 mM NaCl, pH 7,5) is oplosbaar in oplossing en vormt geen zichtbare aggregaten onder lichtmicroscopie (Figuur 4A). In tegenstelling hiermee waren bij het verhitten van dezelfde eiwitpreparatie zichtbare aggregaten waarneembaar onder lichtmicroscopie (Figuur 4B), wat duidt op een verandering in de eiwitconformatie. Vervolgens werd bepaald of de in vivo injectie van HI-C1q de neuronale opname van C1q zou veranderen. De hersenen werden 1 u na injectie verzameld, en elke hemisfeer werd identiek verwerkt zoals beschreven in het bovenstaande protocol. In sagittale coupes van 20 µm werd immunohistochemie uitgevoerd om neuronen te identificeren. Er werden 40x-beelden gemaakt met identieke instellingen van de hippocampus CA3 om NeuN+ neuronen (cyaan) en C1q-594 (rood) vast te leggen (Figuur 5A,B). In de hemisfeer waarin normaal C1q-594 was geïnjecteerd, werd een robuuste C1q-labeling waargenomen (Figuur 5A), terwijl er in de HI-C1q-594-geïnjecteerde hemisferen geen C1q-594 werd waargenomen in CA3, hoewel het fluorescente eiwit kon worden waargenomen rond de randen van de ventrikels (Figuur 4C), wat consistent is met een verandering in de normale C1q-eiwitfunctie voor neuronale opname. Kwantificatie van NeuN+ cellen door handmatige kwantificatie door een geblindeerde experimentator in 8 velden van 40x toonde geen veranderingen in de dichtheid van neuronen in CA3 tussen de hemisferen (Figuur 5D), maar het percentage neuronen dat C1q+ was, was significant verlaagd in hemisferen geïnjecteerd met HI-C1q-594 (Figuur 5C) volgens een tweezijdige t-test (p = 0,026, n = 2 dieren, 2 beelden van elke hemisfeer per dier geanalyseerd).
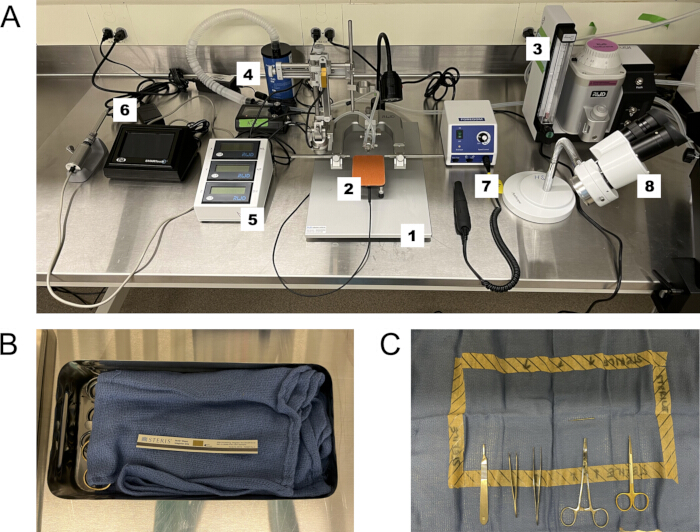
Figuur 1: Chirurgische opstelling en voorbereiding van het steriel chirurgisch veld. (A) Chirurgische apparatuur: 1. Stereotax, 2. Knaagdiervarmeer, 3. Isofluraan-verdamper, 4. Isofluraan-afzuigcanister, 5. Digitale stereotax-arm, 6. Micro-injector, 7. Boormachine, 8. Stereomicroscoop. (B) Geautoclaveerd instrumentarium en steriel chirurgisch veld met een stoomindicatorstrip om de steriliteit te bevestigen. (C) Geautoclaveerde instrumenten worden zorgvuldig met de "punten naar binnen" in het steriele veld geplaatst dat is aangegeven op de geautoclaveerde chirurgische doek. De handvatten blijven buiten het steriele centrum en de punten van de instrumenten mogen het dier pas aanraken na sterilisatie met betadine en 70% ethanol. Klik hier om een grotere versie van deze figuur te bekijken.
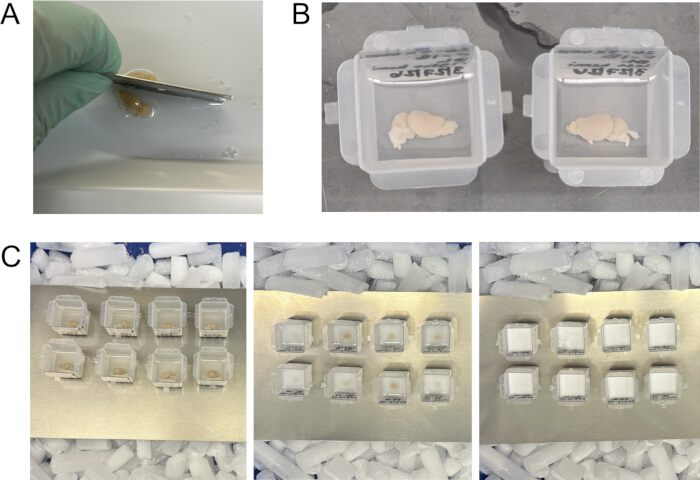
Figuur 2: Verwerking en invriezen van de hersenen voor sagittale sectiering. (A) Gebruik een scheermesje om de hersenen langs de middellijn door te snijden en plaats vervolgens elke hemisfeer met de zijde van de middellijn naar beneden in een vriesvorm. (B) Vul de vormen met een 50:50 mengsel van vriesmedium en 30% sucrose in PBS. (C) Vries de hersenen in de vormen in op droogijs (links). Ze worden ondoorzichtig wanneer ze volledig bevroren zijn (rechts). Klik hier om een grotere versie van deze figuur te bekijken.
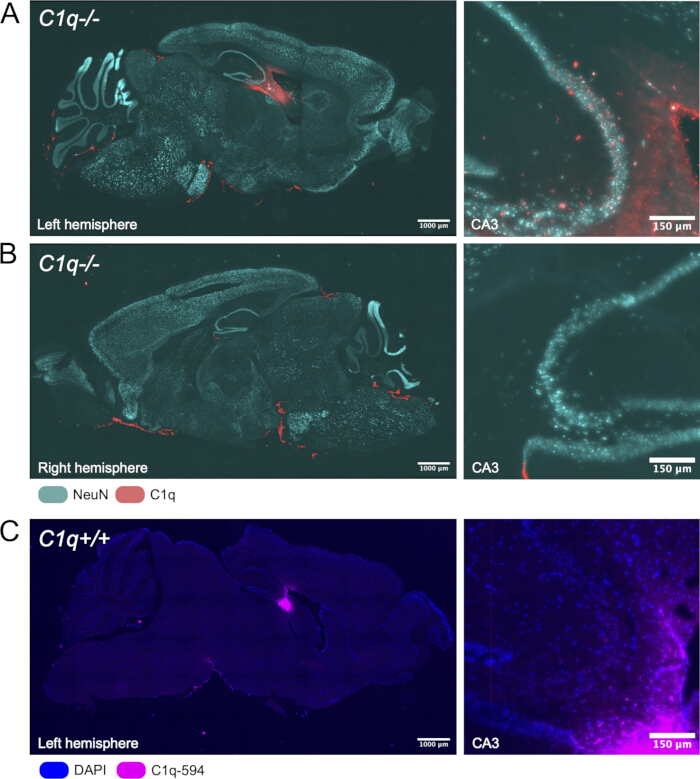
Figuur 3: Representatieve resultaten van intracerebroventriculaire (ICV) toediening van C1q-eiwit 1 u na injectie. (A) Sagittale doorsnede van geïnjecteerd C1q-eiwit (rood) en NeuN+ neuronale soma's (cyaan) in het geïnjecteerde hemisfeer, met een inzet van de CA3-hippocampale regio grenzend aan het ventrikel. (B) Sagittale doorsnede van de tegenovergestelde hemisfeer van de injectie in hetzelfde dier, met geïnjecteerd C1q-eiwit (rood) en NeuN+ neuronale soma's (cyaan), en een inzet van CA3. (C) Sagittale doorsnede van een wild-type dier dat ICV is geïnjecteerd met C1q fluorescent gelabeld met 594-maleïmide-conjugatie (magenta), niet versterkt door immunohistochemie, maar afgedekt met DAPI (blauw), en een inzet van CA3. Schaalbalken linker afbeelding = 1000 µm, schaalbalken rechter afbeelding = 150 µm. Klik hier om een grotere versie van deze figuur te bekijken.
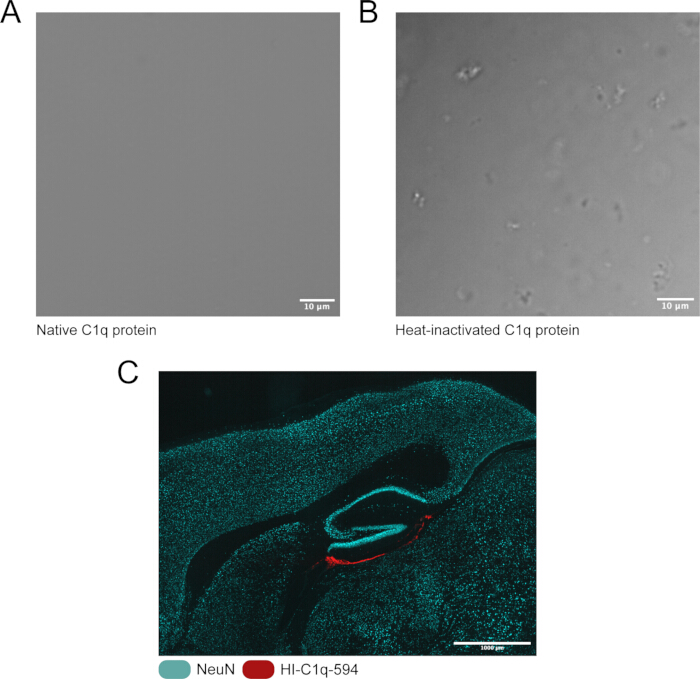
Figuur 4: Hitte-inactivering van C1q-eiwit. (A) Natuurlijk C1q-eiwit, gesuspendeerd in buffer (50 mM HEPES, 150 mM NaCl, pH 7.5) bij 200 μg/mL, afgebeeld met brightfield-microscopie. (B) Dezelfde C1q-eiwitbron, gesuspendeerd in dezelfde buffer bij dezelfde concentratie, maar hittebehandeld bij 56 °C gedurende 30 min vóór afbeolding met brightfield-microscopie. (C) Lokalisatie van hitte-geïnactiveerd (HI)-C1q-594 (rood) en NeuN+ cellen (cyaan) in een sagittale sectie 1 h na ICV-injectie. Bovenste schaalbalk = 10 µm, onderste schaalbalk = 1000 µm. Klik hier om een grotere versie van deze figuur te bekijken.
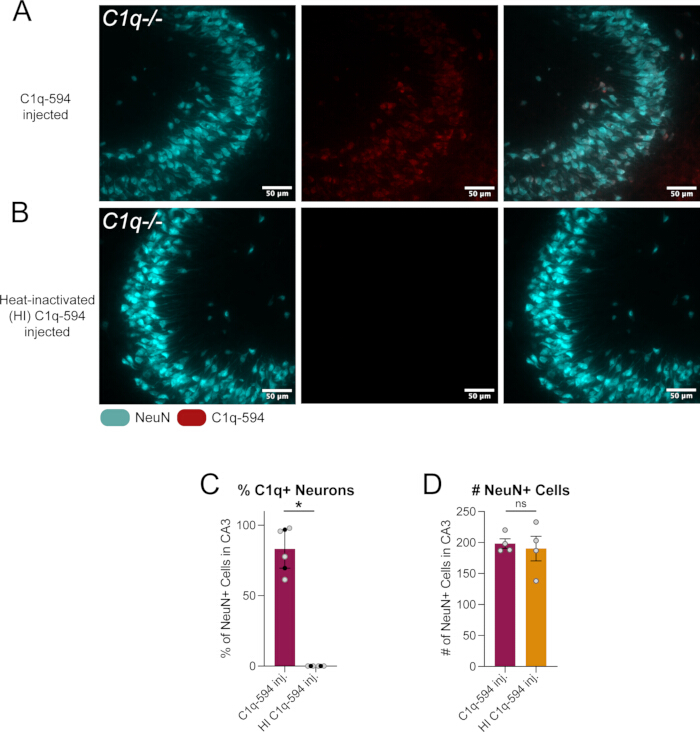
Figuur 5: Kwantificering van de opname van normaal versus hitte-geïnactiveerd C1q-eiwit in neuronen in de hippocampus. (A) Sagittale doorsnede van de CA3-regio van de hippocampus nabij het ventrikel, waar 1 uur voorafgaand C1q-594 is geïnjecteerd. NeuN+ neuronale soma's (cyaan), C1q-594 (rood), en overlay van beide. (B) Sagittale doorsnede van de CA3-regio van de hippocampus nabij het ventrikel, waar 1 uur voorafgaand hitte-geïnactiveerd (HI)-C1q-594 is geïnjecteerd. NeuN+ neuronale soma's (cyaan), C1q-594 (rood), en overlay van beide. (C) Kwantificering van het percentage NeuN+ cellen dat C1q-594+ is in het 40x gezichtsveld, tweezijdige t-test. (D) Kwantificering van het aantal NeuN+ cellen in het 40x gezichtsveld, tweezijdige t-test. Schaalbalken = 50 µm. Klik hier om een grotere versie van deze figuur te bekijken.
| Eiwitlabeling | Antilichaam | |
| Visualisatie | Direct, niet afhankelijk van een antilichaam | Kan kruisreactiviteit vertonen met andere eiwitten, afhankelijk van de beschikbaarheid van het antigeen |
| Voorbereiding | Langere, meer technische preparatie en validatie van het eiwit van belang, aangezien labeling de eiwitstructuur en -functie kan beïnvloeden. De reactieopbrengsten kunnen gering zijn en grote volumes input-eiwit vereisen. | Er is geen voorbereiding nodig; veel antilichamen zijn commercieel verkrijgbaar en reeds gevalideerd |
| Experimentele flexibiliteit | Live-tracking is mogelijk indien gewenst | Fixatie vereist |
| Gevoeligheid | Beperkte gevoeligheid als gevolg van stoichiometrie | Maakt amplificatie mogelijk |
Tabel 1: Voordelen en nadelen van eiwitlabeling vs. antilichaamdetectie.
Discussie
Opkomend bewijs ondersteunt een cruciale rol van microglia bij de homeostase van het CZS, gemedieerd door een steeds complexer repertoire van gesecreteerde factoren5. De mogelijkheid om microglia-afgeleide factoren op een gedefinieerde spatiotemporele wijze af te leveren, biedt een waardevol instrument om complexe neuro-immuuncommunicatie te ontrafelen onder diverse omgevings- en genetische omstandigheden.
Deze methode kan eenvoudig worden aangepast om een verscheidenheid aan biologische vragen te beantwoorden. Hoewel deze methode voorheen is gebruikt om de rollen van C1q, een zeer groot eiwit, in de neuronale functie beter te begrijpen8, zou deze ook kunnen worden toegepast om de rollen van andere grote eiwitten te onderzoeken, evenals kleine eiwitten zoals cytokinen en chemokinen. Hoewel de immuunfuncties van cytokinen en chemokinen redelijk goed begrepen zijn, worden deze factoren in vivo vaak samen afgegeven, in reactie op een stressfactor en op een wijdverspreide manier. Bovendien worden de niet-immuun/niet-canonieke, vaak homeostatische rollen van verschillende immuunfactoren steeds duidelijker. Het gebruik van deze methode maakt het mogelijk om specifieke factoren geïsoleerd te onderzoeken, evenals in specifieke hersenregio's, en zelfs de rollen van deze factoren in de homeostase. Een andere nuttige toepassing van dit protocol zou de toediening van eiwitten van belang zijn in transgene muislijnen, zoals in knockout-lijnen of modellen van specifieke ziektebeelden. De mogelijkheid om de precieze lokalisatie en hoeveelheid van een eiwit van belang te controleren in een muis zonder endogene expressie van dat eiwit, kan worden gebruikt om te bepalen of acute, lokale toediening van het eiwit een effect induceert, zoals een gedragsverandering. Alternatief zou men kunnen injecteren in een transgene lijn die een specifieke receptor of signaleringsproteïne mist waarvan wordt verondersteld dat deze belangrijk is voor de functie van de geïnjecteerde factor.
Daarnaast kan de intracraniële toediening van microglia-afgeleide factoren gelijktijdig met de injectie van andere factoren worden uitgevoerd om ons mechanistische begrip van de functie van een eiwit te verbeteren. Om bijvoorbeeld te bepalen hoe C1q, een microglia-afgeleid eiwit, neuronen binnendringt en interacteert met hun translationele machinerie, hebben we deze techniek eerder gebruikt om een endocytoseremmer 30 min vóór de C1q-injectie gelijktijdig toe te dienen. Dit stelde ons in staat vast te stellen dat C1q neuronen kan binnendringen via endocytose, aangezien gelijktijdige toepassing met de remmer leidde tot een significante vermindering van C1q binnen neuronen8. Vergelijkbare experimenten kunnen worden uitgevoerd met de toediening van blokkerende antilichamen of zelfs andere hypothetische competitieve bindingsfactoren. Deze co-toedieningsexperimenten kunnen ook temporeel worden gemoduleerd door de injectie-intervallen te verlengen of te verkorten, bijvoorbeeld door één factor 30 min vóór de andere te injecteren, of één factor 5 min versus 1 u vóóraf.
Bij het ontwerpen van experimenten met deze methodologie moeten verschillende factoren in overweging worden genomen, beginnend met de strategie voor het detecteren van het eiwit van belang. Hier werden twee representatieve benaderingen gedemonstreerd: directe fluorescente labeling van het eiwit (Figuur 3C) en immunohistochemische detectie met behulp van antilichamen (Figuur 3A), elk met eigen voordelen en beperkingen (Tabel 1). Antilichaamgebaseerde detectie is zeer gevoelig en maakt signaalversterking mogelijk, maar vereist weefselfixatie, waardoor het ongeschikt is voor toepassingen zoals live-imaging van eiwitdynamiek. Directe fluorescente labeling voorkomt deze beperking, maar vereist modificatie van het eiwit zelf, wat de eigenschappen ervan kan beïnvloeden en daarom gevalideerd moet worden. Ongeacht de benadering is een zorgvuldige validatie essentieel. Commerciële antilichamen zijn breed verkrijgbaar, maar kunnen off-target binding of kruisreactiviteit vertonen, waardoor specificiteitstesten cruciaal zijn. Wanneer mogelijk moet de prestatie van het antilichaam worden bevestigd met behulp van passende controles, zoals het vergelijken van kleuring in wildtype- en eiwit-knockoutweefsel, wat de gouden standaard blijft voor antilichaamvalidatie.
Daarentegen vereist directe fluorescentielabeling zowel preparatie als validatie vóór experimenteel gebruik. Hoewel deze aanpak directe visualisatie van het eiwit mogelijk maakt zonder afhankelijk te zijn van antilichamen, is het essentieel om te bevestigen dat de fluorescentietag de eiwitstructuur, lokalisatie, interacties of functie niet verandert. De juiste validatie is eiwitafhankelijk, maar kan onder meer het bevestigen van het verwachte molecuulgewicht via Western blot, het verifiëren van de normale cellulaire of subcellulaire lokalisatie, of het beoordelen van het behoud van bekende eiwit-eiwitinteracties via assays zoals co-immunoprecipitatie omvatten. Uiteindelijk hebben zowel antilichaamgebaseerde detectie als directe eiwitlabeling inherente voordelen en beperkingen, en de meest geschikte aanpak moet empirisch worden bepaald via pilotstudies die zijn afgestemd op het betreffende eiwit en gepubliceerde aanbevelingen19.
Om de betrouwbaarheid van deze methodologie te waarborgen, is het belangrijk dat de stereotaxische coördinaten en de gekozen concentratie van het geïnjecteerde eiwit vooraf empirisch zijn geoptimaliseerd en gevalideerd. Validatie van de coördinaten kan worden uitgevoerd door een proefinjectie van een kleurstof, zoals Fast Green, gevolgd door het direct na de injectie oogsten van de hersenen. Dit maakt visuele bevestiging van de lokalisatie van de kleurstof in het interessegebied mogelijk, en biedt de gelegenheid om de coördinaten aan te passen voor de meest nauwkeurige injectie mogelijk. De auteurs bevelen aan om gebruik te maken van eerder gepubliceerde studies om nauwkeurige stereotaxische coördinaten voor interessegebieden te bepalen, of om coördinaten voor grote of kleine muizen te berekenen op basis van de bregma-lambda ratio, zoals beschreven in het Protocol.
Om experimentele conclusies te kunnen trekken over het geïnjecteerde eiwit, moet een reeks cruciale controles worden overwogen en opgenomen in een goed ontworpen experiment. Er zijn inherente uitdagingen verbonden aan het bestuderen van microglia-afgeleide eiwitten via intracraniale toediening. Wanneer een onderzoeker geïnteresseerd is in de respons op een specifiek eiwit in een bepaald hersengebied, zal de chirurgische ingreep op zichzelf inflammatoir zijn en de resultaten kunnen beïnvloeden. Bij het overwegen van immuungerelateerde eiwitten zijn chirurgische controles het eenvoudigst uit te voeren, waarbij een schijnoperatie wordt uitgevoerd (alle stappen behalve de injectie van een eiwit), een voertuigcontrole-injectie wordt uitgevoerd (alle stappen, maar in plaats van het eiwit wordt hetzelfde volume van alleen de eiwitbufferoplossing geïnjecteerd), of beide. Deze helpen om onderscheid te maken tussen effecten die afhankelijk zijn van de chirurgie of weefselschade versus resultaten van het eiwit zelf. Nog definitiever zou het zijn om een controle op te nemen waarbij een inactief of irrelevant eiwit wordt geïnjecteerd in hetzelfde volume en dezelfde concentratie. Het is belangrijk om de relatieve grootte van het controle-eiwit te overwegen in vergelijking met het experimentele eiwit; C1q is bijvoorbeeld een zeer groot eiwit (~450 kD), waardoor het injecteren van een veelgebruikt controle-eiwit zoals bovine serumalbumine (~66 kD) mogelijk niet het meest geschikt is. Daarom werd hitte-geïnactiveerd C1q gebruikt als inactieve eiwitcontrole. Afhankelijk van de verspreiding van het geïnjecteerde eiwit in het gewenste tijdsbestek vóór verzameling, kan dit worden uitgevoerd als een within-subject controle door een van deze controlecondities op te nemen in het contralaterale hemisfeer ten opzichte van de experimenteel geïnjecteerde hemisfeer, zoals te zien is in Representatieve Resultaten (Figuur 4 en Figuur 5).
Een belangrijke overweging bij het experimentele ontwerp is de strategie voor weefselfixatie, aangezien zowel het type als de duur van de fixatie een diepgaande invloed kunnen hebben op de eiwitvisualisatie, de weefselmorfologie en, in sommige gevallen, de eiwitfunctie. Crosslinking fixatieven alsook paraformaldehyde (PFA) zorgen over het algemeen voor een superieure bewaring van de weefselarchitectuur, maar kunnen de detectie van fixatiesensitieve epitopen verminderen door overmatige eiwit-crosslinking, de autofluorescentie verhogen en antigeen-retrieval noodzakelijk maken. In tegenstelling hiermee bewaren niet-crosslinking fixatieven, zoals oplossingen op basis van alcohol, aceton of methanol, fixatiesensitieve eiwitten vaak beter, maar kunnen ze de weefselintegriteit compromitteren. Deze afwegingen kunnen worden beperkt door de fixatieduur en -methode te optimaliseren, waaronder het gebruik van vers-gevroren coupes met on-slide fixatie, saline perfusie gevolgd door korte onderdompeling in PFA, of standaard perfusiefixatie, afhankelijk van de experimentele doelen. Omdat er geen enkele fixatiestrategie is die optimaal is voor alle toepassingen, dienen onderzoekers de fixatiecondities te selecteren en empirisch te optimaliseren op basis van hun primaire experimentele eindpunten om de beste balans tussen weefselbewaring en eiwitdetectie te bereiken.
Het doel van dit protocol is om de eiwitafgifte te standaardiseren in plaats van methoden voor het kwantificeren van experimentele resultaten voor te schrijven; verschillende benaderingen kunnen echter nuttig zijn, afhankelijk van de doelstellingen van de studie. In dit voorbeeld wordt de celtype-specifieke eiwitopname beoordeeld door middel van immunolabeling met antilichamen tegen cellulaire markers (bijv. NeuN voor neuronen) en het kwantificeren van de colokalisatie met het eiwit van belang (Figuur 5), hoewel fluorescente reporter-muislijnen een alternatieve manier bieden om specifieke celpopulaties te identificeren. Een ander belangrijk resultaat is de eiwitdiffusie, die sterk wordt beïnvloed door de biochemische eigenschappen van het geïnjecteerde eiwit. Wanneer een nauwkeurige karakterisering van de eiwitverspreiding vereist is, raden wij aan om een inerte fluorescente tracer, zoals dextranen met gedefinieerde moleculaire gewichten, mee te injecteren om de injectieverdeling en weefseldiffusie te schatten op gedefinieerde tijdstippen na intracraniale afgifte. Deze experimenten werden eerder door de auteurs uitgevoerd om de experimentele parameters voor de sectie Representatieve Resultaten te bepalen8.
Ten slotte kan tijdens het oplossen van problemen een optimalisatie van de proteïnedetectie en de intracraniële toediening noodzakelijk zijn. Een veelvoorkomende uitdaging is het verkrijgen van een betrouwbaar fluorescent signaal van het proteïne van belang. Zoals hierboven besproken, is de fixatiestrategie een belangrijke bepalende factor voor de signaalkwaliteit. Als een hoge autofluorescentie gepaard gaat met een zwak echt fluorescent signaal, wordt aanbevolen om eerst de duur en/of de mate van weefselfixatie te verminderen, aangezien overfixatie veel voorkomt en kan bijdragen aan zowel verhoogde autofluorescentie als een verminderd doelsignaal. Dit protocol bevat ook een oplossing voor het doven van autofluorescentie, wat de signaal-ruisverhouding van de doelfluorescentie kan verbeteren. Wanneer de injectieprocedure correct wordt uitgevoerd, moet dit resulteren in minimale weefselschade. Er mag geen cavitatie of laesievorming worden waargenomen op de plaats waar de injector het weefsel binnendringt. Als een van beide optreedt, moet de bereiding van de uitgetrokken glazen pipetten mogelijk worden geoptimaliseerd om een schone weefselpenetratie te garanderen. Controleer bijvoorbeeld of de pipetpunt voldoende rigide is en niet buigt bij contact met het hersenparenchym, en pas de schuinte aan indien nodig om een scherpe rand te creëren die een soepele insteek vergemakkelijkt. Voor injecties in diepe hersengebieden moet de lengte van de uitgetrokken pipet mogelijk worden vergroot, zodat het doelgebied kan worden bereikt zonder dat de injector het harsenoppervlak raakt. Bij toediening van het injectaat direct in het hersenparenchym in plaats van in een ventrikel, wordt een klein injectievolume (<1 µL) aanbevolen om oedeem te minimaliseren, cavitatie op de injectieplaats te voorkomen en terugstroom van het injectaat tijdens het terugtrekken van de pipet te verminderen. Het wordt ook aanbevolen om langzaam te injecteren (<500 nL/min) en 5–10 min te wachten na voltooiing van de injectie voordat de pipet wordt teruggetrokken, om het injectaat de kans te geven te diffunderen in het omringende weefsel. Als er vloeistof wordt waargenomen die terugstroomt langs het injectietraject tijdens het verwijderen van de pipet, of als dit wordt gedetecteerd langs het injectietraject na immunohistochemische verwerking, moet het injectievolume en/of de injectiesnelheid worden verlaagd en moet de wachttijd na de injectie worden verlengd.
Openbaarmakingen
De auteurs verklaren dat er geen belangenverstrengeling is.
Dankbetuigingen
Dit werk werd ondersteund door financiering van het National Alzheimer’s Coordinating Center (NACC; NSH), de Alzheimer’s Association (NSH) en de Duke Institute for Brain Sciences (DIBS) Germinator Award (JD).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0,9% zoutoplossing (farmaceutische kwaliteit) | Cytiva | Z1376 | |
| 30 mL spuiten | Becton, Dickinson and Company (BD) | 302832 | |
| 70% ethanol | Koptec | UN1170 | |
| Alexa Fluo 594 C5 Maleimide | Invitrogen | A10256 | |
| Anesthesie-verdamper | RWD | TAIJI-IE | |
| Kraalsterilisator | VWR | 75999-324 | |
| BSA | Genessee Scientific | 25-529 | |
| Vlinderprikker - Vacutainer Safety-Lok | Becton, Dickinson and Company (BD) | 367281 | |
| Dekglasjes - 50 mm No. 1 | Avantor (VWR) | 48393-081 | |
| Digitale knaagdier stereotax | RWD | 68803 | |
| Wegwerpvriesmallen | Electron Microscopy Sciences | 70182 | 22 mm x 22 mm voor sagittale coupes van volwassen muizenhersenen |
| Dissectiemicroscoop | Leica | MZ FLIII | |
| Inbeddingsmedium - Tissue-Tek OCT | Sakura | 4583 | |
| Oogsmeermiddel | Optixcare | OPX-4242 | |
| Glazen pipettrekker | Sutter Instrument Co. | Model P-30 | Wij gebruiken maat 1,14 MM, 3,5" voor onze injector |
| Glazen pipetten | World Precision Instruments | 504949 | |
| Geit anti-konijn AF594 secundair antilichaam | Invitrogen | A-11012 | |
| Geit anti-rat AF488 secundair antilichaam | Invitrogen | A-11006 | |
| Onthaaringscrème | Nair | 42016527 | |
| Verwarmd plateau - Rodent Warmer X1 | Stoelting | 53800M | |
| Snelroterende micromotor (boor) met boorkopjes | Stoelting | 51449 | |
| Isofluraan | Dechra | Isospire | |
| Micro-injector en controller | WPI | NANOLITER2020 | |
| Objectglazen | Premiere | 8348 | |
| Minerale olie, licht | Fisher Scientific Education | S25439 | |
| Inbeddingsmedium met DAPI | Sigma-Aldrich | F6057 | |
| Nagellak | Electron Microscopy Sciences | 72180 | |
| Natuurlijk muizencomplement C1q-eiwit | Creative Biolabs | CTP-463 | Andere fabrikanten kunnen moleculaire verontreinigingen bevatten die de normale C1q-dynamiek in de hersenen remmen |
| PAP-pen - ImmEdge Pen | Vector Laboratories | H-4000 | |
| Paraformaldehyde - 16% | Electron Microscopy Sciences | 15710 | Verdunnen tot 4% |
| Fosfaatgebufferde zoutoplossing (PBS) | Sigma-Aldrich | P3813 | |
| Povidon-jodiumoplossing, 10% (w/v) | Ricca | 3955-16 | |
| Konijn anti-C1q primair antilichaam | Abcam | ab182451 | |
| Rat anti-NeuN (RBFOX3) primair antilichaam | Biolegend | 608451 | |
| Saponine | Sigma-Aldrich | 47036 | |
| Scalpelmesjes - No. 10 | VWR | 76457-442 | |
| Stoomindicatorstrips | Steris | 801010 | |
| Puritan steriele wattenstaafjes | Puritan | 25-806 1WC | |
| Sucrose | Sigma-Aldrich | 84097 | |
| Chirurgische handdoeken | McKesson | 16-6006-B | |
| Weefsellijm - Vetbond | 3M | 1469SB | |
| Tris-gebufferde zoutoplossing | Sigma-Aldrich | T5941, S7653 | |
| TrueBlack | BIOTIUM | 23007 |
Referenties
- Medawar PB. Immunity to homologous grafted skin; the fate of skin homografts transplanted to the brain, to subcutaneous tissue, and to the anterior chamber of the eye. Br J Exp Pathol. 1948;29(1):58-69.
- Medawar PB. Immunological tolerance. Nature. 1961;189:14-17.
- Guo X, et al. Neuro-immune crosstalk: molecular mechanisms, biological functions, diseases, and therapeutic targets. MedComm (2020). 2026;7(2):e70497.
- Castellani G, Croese T, Peralta Ramos JM, Schwartz M. Transforming the understanding of brain immunity. Science. 2023;380(6640):eabo7649.
- Di Pietro AA, et al. Microglia in systemic neuroimmune communication: functions beyond phagocytosis. Trends Immunol. 2026;47(6):495-510.
- Zhou L, Wang Y, Xu Y, Zhang Y, Zhu C. A comprehensive review of AAV-mediated strategies targeting microglia for therapeutic intervention of neurodegenerative diseases. J Neuroinflammation. 2024;21(1):232.
- Yue W, Shen J. Local delivery strategies for peptides and proteins into the CNS: status quo, challenges, and future perspectives. Pharmaceuticals (Basel). 2023;16(6):810.
- Scott-Hewitt N, et al. Microglial-derived C1q integrates into neuronal ribonucleoprotein complexes and impacts protein homeostasis in the aging brain. Cell. 2024;187(16):4193-4212.e4124.
- Fonseca MI, et al. Cell-specific deletion of C1qa identifies microglia as the dominant source of C1q in mouse brain. J Neuroinflammation. 2017;14(1):48.
- Stevens B, et al. The classical complement cascade mediates CNS synapse elimination. Cell. 2007;131(6):1164-78.
- Schafer DP, et al. Microglia sculpt postnatal neural circuits in an activity and complement-dependent manner. Neuron. 2012;74(4):691-705.
- Hong S, et al. Complement and microglia mediate early synapse loss in Alzheimer mouse models. Science. 2016;352(6286):712-6.
- Wang C, et al. Microglia mediate forgetting via complement-dependent synaptic elimination. Science. 2020;367(6478):688-94.
- Stevens B, Johnson MB. The complement cascade repurposed in the brain. Nat Rev Immunol. 2021;21(10):624-5.
- Stephan AH, et al. A dramatic increase of C1q protein in the CNS during normal aging. J Neurosci. 2013;33(33):13460-74.
- Datta D, et al. Classical complement cascade initiating C1q protein within neurons in the aged rhesus macaque dorsolateral prefrontal cortex. J Neuroinflammation. 2020;17(1):8.
- Ling GS, et al. C1q restrains autoimmunity and viral infection by regulating CD8. Science. 2018;360(6388):558-63.
- Zubler RH, Lange G, Lambert PH, Miescher PA. Detection of immune complexes in unheated sera by modified 125I-C1q binding test: effect of heating on the binding of C1q by immune complexes and application of the test to systemic lupus erythematosus. J Immunol. 1976;116(1):232-5.
- Obermaier C, Griebel A, Westermeier R. Principles of protein labeling techniques. Methods Mol Biol. 2015;1295:153-65.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar