We beschrijven een technisch toegankelijk en kosteneffectief protocol voor het imagen van de vroege ontwikkeling van wormen, geschreven voor nieuwe onderzoekers.
Methodenartikel
Beeldvorming van de vroege ontwikkeling van wormen: een praktische handleiding voor nieuwe onderzoekers
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Volgens het overzicht van de stamdistributie van het Caenorhabditis Genetics Center (CGC), gepresenteerd tijdens de 25ste International Worm Meeting in 2025, gebruiken ongeveer 8.000 laboratoria in 80 landen deze dieren in hun onderzoek. Het opzetten van een duurzaam platform voor kweek en onderhoud is essentieel voor het genereren van eigen data over het gedrag van wormen, vooral in laboratoria met beperkte ervaring of middelen. Hier presenteren we, met Caenorhabditis elegans als voorbeeld, een praktisch protocol voor nieuwe onderzoekers om basisworkflows voor het hanteren en imageren van wormen op te zetten. Vervolgens beschrijven we procedures voor het verzamelen van normale en verstoorde C. elegans-monsters in geselecteerde vroege ontwikkelingsstadia voor microscopische beeldvorming. De imagingdoelen omvatten de ontwikkeling van kiemcellen (mitose en meiose), oocyten vóór de bevruchting, migratie en fusie van oocyt- en spermpronuclei, pseudocleavage en de embryonale ontwikkeling (mitose) die leidt tot het organisme. Hoewel imaging van embryo's en het gehele organisme ongecompliceerd is, bieden we verbeterde richtlijnen en technische tips om precieze dissectie van de kiemlijn en embryo's, snelle monstercollectie, montage, timelapse-imaging en basisbeeldanalyse te faciliteren.
Inleiding
Aaltjes behoren tot de krachtigste modelorganismen in het biomedisch onderzoek1,2, dankzij hun zeer reproduceerbare ontwikkelingsprogramma en de diversiteit die aan het licht is gekomen door genperturbaties3,4,5,6 en verwante soorten7,8,9,10. Sinds de introductie door Sydney Brenner in de jaren 60 is Caenorhabditis elegans (C. elegans) naar voren gekomen als een representant die wordt onderscheiden door zijn kleine formaat, optische transparantie, snelle levenscyclus van drie dagen, volledig in kaart gebrachte cellijn, gesequenced en geannoteerd genoom, en geavanceerde genetische toolkits voor het beheersen van genfuncties11,12,13,14,15,16. Centraal in deze onderzoeken staat het vermogen om dynamische biologische gebeurtenissen te visualiseren via microscopie, in het bijzonder in de kiemlijn en het embryo — het continuüm van ontwikkeling van meiose en mitose tot de vorming van een compleet organisme17. Gedurende dit proces verlopen snelle meiotische en opeenvolgende mitotische delingen, evenals multicellulaire reorganisatie, met een opmerkelijke spatiotemporele precisie17.
Vergeleken met het embryo, dat doorgaans in vitro wordt gemonitord, is de kiemlijn in vivo een ideaal systeem voor het bestuderen van zowel meiose als mitose binnen één enkel weefsel, vooral voor beginnende onderzoekers, aangezien de ruimtelijk gescheiden meiotische en mitotische zones gelijktijdige observatie van deze verschillende modi van celdeling mogelijk maken (Figuur 1)18. In de kiemlijn van C. elegans, die is georganiseerd als een syncytium, zijn kiemcellen onderling verbonden via een gedeelde cytoplasmatische kern—de rachis18 (Figuur 1). De proliferatie van kiemcellen vindt plaats via mitose in de distale gonadearm door onvolledige en asymmetrische delingen van primordiale kiemcellen (PGC). Tijdens de late larva-4 (L4) fase detacheren syncytiale pachyteen spermatocyten progressief van de rachis en treden ze in de meiose in de proximale gonadearm19. Dit kan direct in vivo worden afgebeeld in geïmmobiliseerde/geanestheseerde dieren of in vitro in gedissecteerde primaire spermatocyten20,21.
Biologische fenomenen in de kiemlijn en het embryo zijn uitzonderlijk rijk en breed relevant over diverse wetenschappelijke onderzoeksgebieden. Na de meiotische rijping treden vanuit kiemcellen afgeleide oocyten de spermatheca binnen om bevrucht te worden door sperma, wat de embryogenese in gang zet22,23. Hun uitstekende ontwikkelingsrobuustheid maakt C. elegans-embryo's een uitstekend model voor het onderzoeken van de moleculaire mechanismen van celpolariteit, celdeling, de celcyclus en celbeweging24,25. Jonge volwassen wormen kunnen worden gedisseceerd om vers bevruchte embryo's vrij te maken, die vervolgens worden geselecteerd voor time-lapse imaging van belangrijke ontwikkelingsmijlpalen, waaronder, maar niet beperkt tot, de migratie en fusie van de pronuclei van oocyt en sperma, pseudocleavage, asymmetrische celdeling, gastrulatie, organogenese, etc.
Hoewel optische toegang tot volledige en gedeeltelijke structuren in de kiemlijn en het embryo in principe altijd haalbaar is, blijft microscopie van publicatiekwaliteit berucht uitdagend voor nieuwkomers. "Standaard" geschreven protocollen in de literatuur vatten complexe procedures vaak samen in schaarse, ambigue beschrijvingen die het genuanceerde "gevoel" van de techniek niet vatten. Voorbeelden hiervan zijn de exacte hoeveelheid anestheticum, de behoedzame hantering die nodig is om beschadiging van de gonade tijdens de dissectie te voorkomen, en de precieze selectie van het brandvlak voor de microscopie. Als gevolg hiervan kunnen beginnende onderzoekers routinematig maanden van frustrerende trial-and-error ervaren, waarbij herhaaldelijk mentorschap, oefensessies en uitgebreide probleemoplossing nodig zijn voordat er consistent bevredigende beelden worden verkregen. Deze inefficiënte kennisoverdracht vertraagt de voortgang van het onderzoek en introduceert ongewenste technische variabiliteit die de interpretatie van gegevens tussen laboratoria kan compromitteren.
In de kiemlijn bijvoorbeeld maken de anatomische complexiteit van de gonade en obstructies door andere weefsels (bijv. de darm) het moeilijk om de celmorfologie of divisiedynamiek in vivo waar te nemen. Bovendien brengt de kiemlijn extra uitdagingen met zich mee vanwege de delicate tubulaire structuur en de extreme gevoeligheid voor montagedruk. In vitro imaging geniet daarom de voorkeur, niet alleen voor algemene observatie van de kiemlijn en het embryo, maar ook voor gedetailleerde celresolutie-observatie. Zo kunnen individuele proximale primaire spermatocyten die uit de gonade zijn gedisseceerd, twee opeenvolgende ronden van meiose voltooien om vier haploïde spermatiden te worden; het ontbreken van weefselstructuur-schaduwen maakt het bovendien eenvoudiger om beelden van hogere kwaliteit vast te leggen. Deze observaties kunnen worden uitgebreid naar andere weefsels of het hele lichaam26,27,28,29,30,31,32. Gemakkelijk genoeg kan elke handeling in 1 h worden voltooid, wat timelapse imaging vergemakkelijkt.
Hier presenteren wij een praktisch, stapsgewijs protocol voor timelapse-imaging over geselecteerde ontwikkelingsstadia, van kiemcelontwikkeling tot embryonale ontwikkeling. Dit omvat niet alleen imaging-procedures, maar ook voorbereidende stappen (bijv. dissectie van de worm) om de technische drempel voor onderzoekers die nieuw zijn met worm-imaging te verlagen33. Ons protocol belicht de real-time visuele demonstratie van microscopische imaging voor zowel de kiemlijn als het embryo—van geoptimaliseerde montageprocedures die de levensvatbaarheid tijdens opnames van meerdere uren behouden, tot de configuratie van microscoopparameters die een balans vinden tussen de signaal-ruisverhouding en het minimaliseren van fototoxiciteit/fotobleaching, en basisbeeldacquisitie.
Protocol
OPMERKING: Het succesvol langdurig onderhouden van C. elegans-populaties vormt de basis voor subsequent experimenteel werk en vereist de consistente productie van hoogwaardig nematode growth medium (NGM), betrouwbare propagatie van bacteriële voedselbronnen, geschikte omgevingsomstandigheden voor de groei en reproductie van stammen, en effectieve strategieën om cultuurverlies door contaminatie te voorkomen.
1. Wormkweek en onderhoud
OPMERKING: Wij geven hier slechts enkele adviezen; gedetailleerde procedures kunnen worden gevonden in Wormbook34. Gebruik NGM-voorgaemengd poeder om de weeg- en bereidingsstappen te verminderen.
- Kweek alle dieren op NGM-agar waarop voedsel is gezaaid E. coli OP50 bij 20 °C voor wild-type (WT) en 16 °C of 25 °C voor temperatuurgevoelige mutanten (ts-mutanten).
OPMERKING: Eerstejaarsstudenten dienen bij ontvangst de kweektemperatuur voor CGC-mutantstammen te verifiëren.
OPMERKING: WT-dieren groeien sneller bij hogere temperaturen; ts-mutanten kunnen embryo's produceren bij 16 °C (toelaatbare temperatuur) maar niet bij 25 °C (restrictieve temperatuur waarbij zij verlies-van-functie-effecten vertonen in een specifiek gen of eiwit)35,36,37,38De stammen en het voedingsmedium kunnen worden gekocht bij CGC [https://cgc.umn.edu] of als gift worden verkregen van nabijgelegen laboratoria. - Verplaats de dieren naar nieuwe platen vóór de uithongering (met aanzienlijk minder Escherichia coli (E. coli) OP50 onder de microscoop waargenomen) om ze gezond te houden voor verdere experimenten (~2–3 dagen).
- Bewaar de dieren in vriesbuffer (S-buffer aangevuld met glycerol tot een eindconcentratie van 15%) bij -80 °C een nacht laten staan en ze overbrengen naar een vriesbox of vloeibare stikstof voor langdurige bewaring34.
OPMERKING: Label alle cryovials vóór het invriezen met watervaste, op olie gebaseerde permanente markers. Inktjes op waterbasis zijn niet geschikt voor bewaring bij ultralage temperaturen.
2. Bereiding van het agarose-kussen
- Weeg 3 g agarose af en breng dit over naar een conische kolf van 250 mL. Voeg 100 mL M9-buffer toe, meng goed en verhit dit in een magnetron gedurende 2–3 min tot de agarose volledig is opgelost (hierna aangeduid als agarosebuffer).
OPMERKING: Dek de opening van de kolf af met bakpapier om verdamping van de buffer te voorkomen en fouten in de osmotische concentratie te minimaliseren. Het totale volume kan worden aangepast aan de vereisten van het experiment. - Breng de goed gemengde agarosebuffer over naar een centrifugebuis van 1,5 mL, die tot 1 maand bij kamertemperatuur bewaard kan worden. Smelt de bewaarde agarose in een heater block ingesteld op 90–100 °C (sla deze stap over bij gebruik van vers bereide agarose).
- Snijd de punt van een 200 µL pipetpunt af om de opening te verbreden en verstopping door stolling te voorkomen, en breng een druppel van de gesmolten agarosebuffer aan op het objectglas (afmeting: 75 x 25 mm; dikte: 0,9–1,10 mm; type: soda-limeglas).
- Dek de druppel onmiddellijk af met een ander glasplaatje. Breng extra agarosebuffer aan rond de randen van de dekglasjes (afmeting: 22 x 22 mm; dikte: 0,25 mm) en druk de agar voorzichtig uit tot een dunne, ronde cirkel die elk dekglasje volledig omringt, waarbij u er zeker van bent dat er geen luchtbellen zijn ingesloten.
OPMERKING: Dit creëert een afgesloten microkamer voor immobilisatie van het dier en voorkomt uitdroging. Meerdere preparaten kunnen parallel worden verwerkt voor high-throughput experimenten. - Laat de agar ten minste 3 min afkoelen tot deze volledig is gestold voordat u deze gebruikt.
OPMERKING: Gebruik het agarosekussen voor beeldvorming zodra het gestold is, zodat het dier geen stress ervaart. De vaste agar zal water uit het centrum absorberen, wat uiteindelijk tot de dood van het dier leidt.
3. In vivo observatie van spermatogenese in hermafrodiete of mannelijke wormen (Figuur 1 en Suppletaire Video S1)
- Bereid een agarosepad voor zoals hierboven beschreven in sectie 2.
- Breng snel 10–20 NMY-2::GFP-gelabelde dieren20 (late L4-stadium) over naar 5–10 µL 0,5% tetramisole hydrochloride verdund in M9-buffer op een dekglas.
OPMERKING: Om beweging en uitdroging van de dieren te voorkomen, moet worden vermeden dat er te veel of te weinig buffer wordt toegevoegd. Selecteer wormen die zijn weggekropen van of buiten de grens van het bacteriële gazon (de E. coli-cluster met een wazig en semi-transparant gebied is onder een microscoop waarneembaar) om onbedoelde overdracht van E. coli samen met de worm te voorkomen, wat de beeldvorming kan verstoren. - Incubeer gedurende 1 min tot de dieren volledig zijn geanestheseerd.
- Verwijder voorzichtig het bovenste objectglas, waarbij het agarosepad op het onderste objectglas achterblijft.
- Keer het objectglas met het agarosepad om. Raak het pad voorzichtig aan en laat het op de wormen in de buffer zakken om de vorming van luchtbellen te voorkomen. Draai het objectglas om zodat het dekglas naar boven wijst.
OPMERKING: Vermijd snelle bewegingen van het dekglas, aangezien dit het lichaam van de worm kan beschadigen. - Breng met een 200 µL pipetpunt verhitte vloeibare vaseline aan (voorverwarmd samen met vaste agar), beweeg de pipetpunt snel langs de rand van het dekglas en laat de vaseline afkoelen om het dekglas aan het objectglas te bevestigen.
- Plaats het objectglas op de microscooptafel voor beeldvorming van de ontwikkeling van de kiemcellen.
- Voor enkelvoudige beelden kan het laservermogen en de belichtingstijd worden verhoogd om het fluorescentiesignaal te optimaliseren (afhankelijk van de sterkte van de fluorescentie-expressie in verschillende stammen), wat naar behoefte kan worden verhoogd voor een betere visualisatie van de fluorescentie.
- Gebruik voor timelapse/Z-stacks een lager excitatievermogen en een kortere belichtingstijd om fototoxiciteit/fotobleking te minimaliseren.
OPMERKING: Het doel is om ruimtelijke en temporele beeldvormingsgegevens te verkrijgen met minimale negatieve effecten op de groei van de worm.
4. In vivo observatie van PGC-delingen (Figuur 1 en aanvullende video S1)
- Bereid een agarosepad voor zoals hierboven beschreven in sectie 2.
- Breng 10 NMY-2::GFP-gelabelde dieren39,40 (late L1- tot jongvolwassen stadium) over naar 5–10 µL 0,5% tetramisolhydrochloride verdund in M9-buffer op een dekglas.
- Incubeer gedurende 1 min tot de dieren volledig geïmmobiliseerd zijn.
- Verwijder het bovenste objectglas, zodat het agarosepad op het onderste objectglas achterblijft.
- Keer het objectglas met het agarosepad om. Raak het pad met de wormen in de buffer voorzichtig aan om luchtbellen te voorkomen. Draai het objectglas om zodat het dekglas naar boven wijst.
- Afdichten van de rand van het dekglas met vaseline met behulp van een 200 µL pipetpunt, zoals beschreven in stap 3.6.
- Plaats het objectglas op de microscopietafel voor beeldvorming.
5. Dissectie van de kiemlijn voor in vitro observatie van mannelijke spermatogenese (Aanvullende Figuur S1 en Aanvullende Video S2)
OPMERKING: De grootte van de spuit kan worden aangepast naar persoonlijke voorkeur. Mannetjes bezitten een volledige en enkele kiemlijn die één gonade bevat, terwijl hermaphrodieten twee gonaden hebben (beide produceren sperma van de late L4-fase tot het jongvolwassen stadium, en produceren oocyten in latere stadia)41.
- Vers bereiden in vitro kweekbuffer (Leibovitz L-15 medium met 15% FBS).
OPMERKING: De buffer moet worden bewaard in een 4 °C koelkast voor maximaal een week. Het serum kan worden verdeeld over verschillende buisjes voor langdurige bewaring bij -20 °C. - Plaats ongeveer 10 N2- of fluorescentielabelled (NMY-2::GFP; mCherry::Histone) mannelijke wormen (late L4-stadium) in een centrifugebuis van 1,5 ml met 500 µL van kweekbuffer.
- Centrifugeer de buis bij 1.000 × g gedurende 2 min. Verwijder voorzichtig de bovenste 400 µL van buffer.
- Toevoegen 400 µL van kweekbuffer en herhaal stappen 5.2–5.3.
- Overbreng de resterende buffer (met de dieren) naar een dekglas. Voeg een passend volume tetramisolhydrochloride (eindconcentratie 0,1%) of levamisool (eindconcentratie 0,1 mM) toe om nematoden te immobiliseren via agonisme van de nicotinische acetylcholine-receptor.41 en lokale anesthetische activiteit42Wieg het dekglas voorzichtig tot de wormen stoppen met bewegen.
OPMERKING: Om de kosten te verlagen, kan de M9-buffer worden gebruikt voor de initiële wasstappen om het debris te verwijderen of E. coliVoeg de kweekbuffer alleen toe tijdens de laatste wasstap of vóór de preparatie van het objectglas. Stappen 5.2–5.3 kunnen worden weggelaten om het proces te versnellen bij speciale vereisten of als de buffer zeer schoon is. - Bevestig twee 28 G naalden aan spuiten, waarbij u in elke hand één spuit vasthoudt. Plaats het dekglas onder de dissectiescoop en positioneer de naalden in een hoek van 30–45° hoek over een worm. Maak een incisie nabij de proximale gonaderarm om gonadeweefsel vrij te maken. Herhaal dit voor alle dieren.
OPMERKING: Hierdoor komt lichaamsdebris vrij. Voor beginners wordt meer oefening aanbevolen. De maximale tijd voor een volledige dissectie in paralytische buffers kan bedragen tot <5 min. Pas de timing aan op basis van de experimentele doelen. - Wrijf het dekglas rond en verzamel het debris. Aspireer het grote debris voorzichtig met een pipet en laat zo min mogelijk buffer achter, terwijl u ervoor zorgt dat de kleine primaire spermatocyten op het dekglas blijven.
OPMERKING: Vermijd een te grote hoeveelheid buffer onder het dekglas; een overschot veroorzaakt verschuivingen tijdens het monteren. - Neem een schoon objectglas en dek het dekglas voorzichtig af met gedissecteerde primaire spermatocyten. Afdichten van de rand van het dekglas met verwarmde vloeibare vaseline, zoals beschreven in stap 3.6.
OPMERKING: Breng vóór het afdichten een kleine hoeveelheid vloeibare vaseline aan op de vier hoeken van het dekglas om mechanische disruptie van de spermatocyten te voorkomen. - Overbrengen naar de microscoop voor beeldvorming.
OPMERKING: Vermijd het gebruik van agarose-pads. Vloeibaar medium biedt een transparantere achtergrond, wat een superieure optische helderheid geeft voor het onderscheiden van de primaire spermatocyten.
6. Dissectie van de wormen en in vitro observatie van bevruchting en embryogenese onder fluorescentie (aanvullende figuur S2, aanvullende figuur S3, aanvullende video S3, en aanvullende video S4) en brightfield (figuur 2 en aanvullende video S5)
OPMERKING: Embryo's in een vroeg stadium werden verkregen door twee naalden van 28 G te kruisen met de schuine openingen in tegenovergestelde richtingen nabij de spermatheca. De kamer werd afgesloten om te voorkomen dat de vloeistof zou verdampen en onmiddellijk naar de microscoop overgebracht.
- Om de invloed van de druk van het dekglas en het agarose-kussen op de embryo's te elimineren, boort u met een boormachine een centraal gat van 10 mm in een Petri-schaal van 35 mm. Sluit de onderzijde af met een microscoopdekglas van 22 mm om een herbruikbare kamer voor geïnverteerde confocale microscopie te creëren.
- Voeg ongeveer 30 µL M9-buffer toe aan de kamer.
OPMERKING: Dit volume is voldoende voor 4 u timelapse-imaging per ronde. Het buffervolume maakt continue imaging mogelijk van de migratie en fusie van de pronuclei van de oöcyt en het sperma tot aan het spiertrekkingen van het embryo vóór het uitkomen. - Selecteer hermafrodieten. Breng ongeveer 20 jonge volwassen dieren over naar de M9-buffer in de imagingkamer.
OPMERKING: Mannetjes produceren alleen sperma, geen embryo's. - Gebruik een injectienaald om tweemaal een dwarsdoorsnede bij de spermatheca te maken om meer vroegstadium-embryo's vrij te maken. Gebruik een wimperpincet om het lichaam van het dier te verwijderen.
OPMERKING: In de praktijk is een platina-pincet te hard om lichaamsresten in vloeistof te verwijderen. We bevelen ook een kunstwimperpincet aan (met meerdere uiteinden) om resten zoals met een vork te verwijderen, wat beter functioneert dan een standaard echte wimperpincet. - Dek de Petri-schaal af met het deksel om verdamping van de vloeistof te voorkomen.
7. Timelapse-beeldvorming onder de microscoop
- Plaats het objectglas/de kamer op de microscoop (bijv. een omgekeerde spinning-disk confocale microscoop, uitgerust met een 60×/1,4 NA objectief en een EMCCD-camera) onder het veld met de laagste vergroting (10×) en zoek naar dieren, primaire spermatocyten of recent bevruchte embryo's in het gewenste stadium.
- Bepaal bij niet-fluorescerende wormen het ontwikkelingsstadium van vroege embryo's aan de hand van de locatie van de celkern, de fusiestatus en de morfologie van de klievingsgroef (Figuur 2 en Aanvullende Video S5).
- Zoek bij in vitro gedissecteerde primaire spermatocyten naar cellen die zich voorbereiden op deling, losgekoppeld zijn van de rachis en rond verspreid liggen in de buffer (Aanvullende Figuur S1 en Aanvullende Video S2).
- Identificeer bij fluorescerende wormen de stadia op basis van eiwitdistributie en celmorfologie.
OPMERKING: Fluorescentie werd gedetecteerd met een excitatielijn van 488 nm met een emissiefilter van 525–550 nm voor GFP en een excitatielijn van 561 nm met een emissiefilter van 607–636 nm voor RFP/mCherry.
- Lokaliseer deze cellen of embryo's en schakel over naar een hogere vergroting (63× of 100×).
OPMERKING: Omdat de principes voor het prepareren en beelden van cellen en embryo's hetzelfde zijn, demonstreert de visuele experimentele handleiding het geval van gedissecteerde embryo's met behulp van zowel helderveld- als fluorescentiekanalen. - Start de Z-stack (typisch met een interval van ≤1 µm) videoregistratie of maak een snapshot met de acquisitiesoftware van de microscoop, met een scaninterval van minimaal 1 s, afhankelijk van het aantal Z-lagen en de onderzoekseisen.
OPMERKING: Verlaag bij fluorescerende stammen die gevoelig zijn voor fotobleking/fototoxiciteit de lasersterkte en verkort de belichtingstijd om fotobleking/fototoxiciteit tijdens langdurige beeldvorming te verminderen. - Sla alle beelden op in .tiff-formaat voor de beeldoutput en behoud de originele beeldinformatie.
8. Beeldanalyse
OPMERKING: Individuele .tiff-afbeeldingen of timelapse-stacks kunnen worden geroteerd, bijgesneden, gelabeld, gemeten en verwerkt met behulp van microscoopspecifieke software of algemene analysesoftware zoals Fiji/ImageJ [https://imagej.net/software/fiji], een open-source platform voor biologische beeldanalyse43.
- Open de verkregen beelden in Fiji/ImageJ. Controleer de fluorescentiesignaalintensiteit en de distributie van individuele fluorescente puncta of structuren. Selecteer Image | Adjust | Brightness/Contrast en Image | Hyperstacks | Stack to Hyperstack om de kanalen, de Z-lagen en de tijdspunten in een enkel tiff-beeld te scheiden. Selecteer Image | Color | Channels Tool om de kleurbalans voor presentatie te optimaliseren.
- Gebruik Image | Transform | Rotate om elk beeld te roteren zodat de worm horizontaal is georiënteerd met de kop naar links. Gebruik Image | Crop om indien nodig onnodige lege regio's te verwijderen.
- Gebruik Image | Stacks | Z Project om een Z-projectie te genereren vanuit representatieve frames met voldoende signaal.
OPMERKING: Voor een optimale visualisatie wordt aanbevolen om frames met een hoog contrast samen te projecteren. Om echter relatieve verschillen binnen dezelfde specifieke weefsels of organellen over verschillende groepen te vergelijken, kunnen meerdere frames met volledige informatie samen worden geprojecteerd, zelfs als het signaal zwak is. - Gebruik File | Save As | Tiff om de geprojecteerde beelden op te slaan voor verdere analyse.
- Kalibreer, afhankelijk van de gebruikte confocale microscoop, de beeldschaal zodat pixels worden omgezet in micrometers (µm). Gebruik na kalibratie Analyze | Tools | Scale Bar om een schaalbalk toe te voegen.
OPMERKING: De bovenstaande beeldbewerking is beperkt tot visualisatie en de voorbereiding van figuren. Wanneer batchverwerking of geautomatiseerde metingen vereist zijn, gebruik dan Fiji/ImageJ of andere open-source tools, zoals CellProfiler44 en op Python gebaseerde analysepipelines45.
Resultaten
Het visualiseren van C. elegans op cellulair niveau voor fenotypische analyse vereist traditioneel een aanzienlijke investering in optische apparatuur, maar moderne consumentenelektronica en innovatieve adaptersystemen maken nu bevredigende beeldvormingsmogelijkheden mogelijk tegen zeer gereduceerde kosten. Om de gonadenstructuur van hermafrodieten in vivo af te beelden via confocale microscopie of andere gemakkelijk beschikbare instrumenten, gebruiken we een stam met twee fluorescente labels20, waarbij NMY-2::GFP de algemene structuur van de U-vormige gonade, de rachis en de corticale regio van primaire spermatocyten markeert, en mCherry::Histone de nucleusmorfologie en het ontwikkelingsstadium laat zien (Figuur 1 en Aanvullende Video S1). Deze twee eiwitten worden veelvuldig gebruikt in verschillende studies46,47,48. Om het grootste deel van de 3D-structurele informatie vast te leggen, hebben we de volledige Z-stack verkregen met intervallen van 1 µm van de onderkant tot de bovenkant van de gonade van het wormpje. Op basis van de compacte massa van het chromosoom en de zwakke accumulatie van NMY-2 in de equatoriale regio bevinden de meest proximale primaire spermatocyten zich in het karyosoomstadium, wat aangeeft dat deze cellen hun eerste deling beginnen (Figuur 1 en Aanvullende Video S1). Daarnaast vinden mitotische delingen van PGC's plaats in de distale regio van de gonade, die ook met dit protocol kunnen worden vastgelegd.
Voor in vitro observatie van spermatogenese bereiden we eerst de cultuurbuffer voor. De wormen worden gedissekeerd en kiemlijnspermatocyten worden in de buffer vrijgegeven. Het is essentieel om snel de primaire spermatocyten te lokaliseren die zich voorbereiden op hun eerste deling, geïdentificeerd aan de hand van de kernmorfologie (begin van het afbreken van de kernenveloppe) of de morfologie van de gehele cel. Fluorescente stammen maken het gemakkelijker om het juiste ontwikkelingsstadium te identificeren. Beelden worden met intervallen van 30 s vastgelegd om een balans te vinden tussen fototoxiciteit/fotobleken en de efficiëntie van de beeldopname. (Aanvullende Figuur S1 en Aanvullende Video S2).
Om meer informatie over de vroege embryogenese te verkrijgen, lokaliseren we eerst vers bevruchte embryo's via het brightfield-kanaal, waarbij de vaderlijke en moederlijke kernen zich aan tegenovergestelde uiteinden van het embryo langs de hoofdas bevinden en naar elkaar toe bewegen voor fusie. Voor embryo-observatie met standaardpreparaten, we hebben een stam gebruikt die GFP::Histon tot expressie brengt49 en mCherry::PH50 om respectievelijk de celkern en de dynamiek van het celmembraan te labelen. Deze beelden worden vastgelegd op verschillende Z-lagen om de volledige celdeling te tonen (Aanvullende figuur S2 en Aanvullende video S3). Houd er rekening mee dat het vermogen om de embryo's in het juiste stadium te identificeren essentieel is. We selecteerden embryo's in een vroeg stadium en maakten gebruik van continue registratie om de volledige ontwikkelingsprogressie vast te leggen zonder fysieke verstoring. Deze aanpak maakt het mogelijk >500 minuten aan timelapse-opnamen die het gehele proces omvatten vanaf de bevruchting tot aan het spiertrekken (Figuur 2 en Aanvullende video S5). Naast het wildtype zijn er ook mutanten beschikbaar voor vergelijkende beeldvormingsstudies. Zo is HUM-2 de homoloog van het menselijke myosine V, dat een cruciale rol speelt bij de distributie van organellen, vesikels en mRNA, en belangrijk is voor de dierlijke fysiologie en cellulaire functie51Ter illustratie werd het protocol ook gebruikt om de dynamiek van de klovingsgeul vast te leggen in de hum-2 (Helaas bevat uw bericht geen brontekst om te vertalen. Voeg alstublieft de Engelse tekst toe die u naar het Nederlands vertaald wilt hebben.) mutant voor visuele vergelijking (Aanvullende figuur S3 en Aanvullende video S4). Ten slotte worden de .tiff-afbeeldingen verwerkt en bijgesneden in ImageJ/Fiji en uitgelijnd in beeldbewerkingssoftware voor directe visuele vergelijking52.
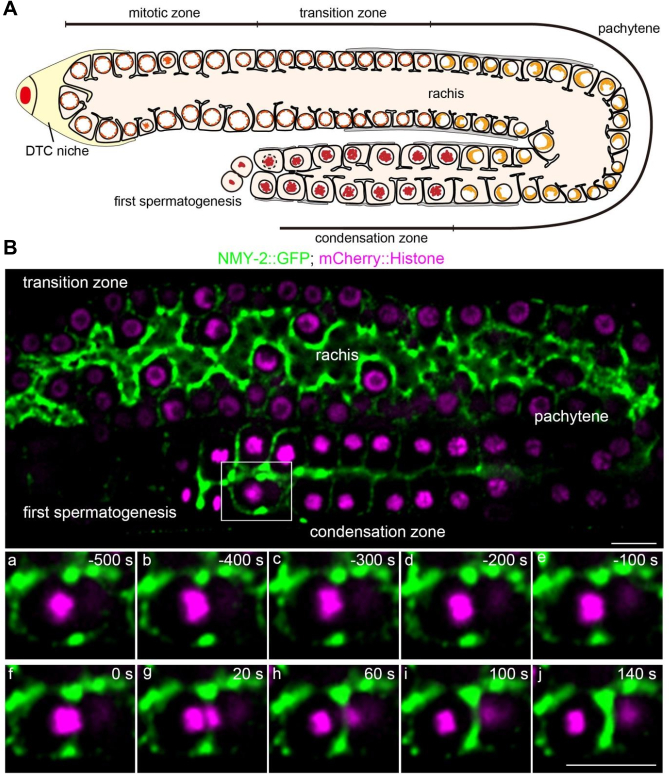
Figuur 1: Schema en fluorescentiebeeld van de distributie van de gonadezones in wormen in het late L4-stadium. (A) Schema van de gonadestructuur van een worm in het late L4-stadium. DTC = distal tip cell. (B) Fluorescentiebeeld waarop NMY-2::GFP de rachis en de corticale regio van proximale spermatocyten labelt, en mCherry::Histone de nucleaire morfologie labelt in verschillende ontwikkelingsstadia. Schaalbalk = 10 µm. Klik hier om een grotere versie van deze figuur te bekijken.
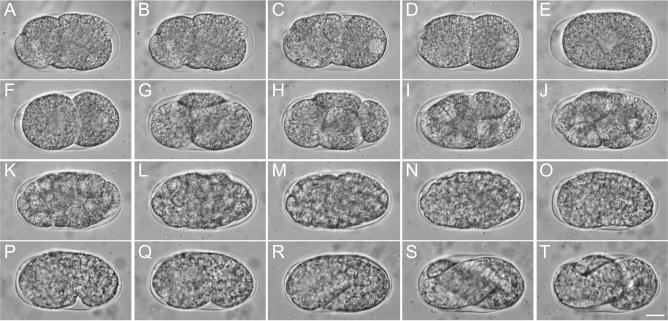
Figuur 2: Embryonale ontwikkeling van C. elegans. (A-E) Fusiestadium tot ééncelstadium, omvattende de migratie en fusie van de pronuclei van de oocyt en het sperma, pseudocleavage en de vestiging van het ééncelstadium. (F-J) Tweecelstadium tot multicellular stadium. (K-O) Gastrulatiestadium. (P-T) Commastadium tot spiertrekkingen. Schaalbalk = 10 µm. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende figuur S1: Representatieve demonstratie van imaging van volledige spermatogenese. (A) Begin van de afbraak van de kernenvelope. (B) Prometafase van meiose I. (C) Vorming van de contractiele ring en start van de insnoering; (D) Voltooiing van meiose I; (E) Start van meiose II. (F) Furrow-insnoering van twee secundaire spermatocyten. (G) Telofase van meiose II. (H) Voltooiing van meiose II en vorming van vier spermatiden en één centraal gelokaliseerd residuallichaam. Schaalbalk = 10 µm. Klik hier om dit bestand te downloaden.
Aanvullende figuur S2: Representatieve demonstratie van beeldvorming van vroege embryogenese, waarbij GFP::Histone de celkern labelt en mCherry::PH het celmembraan labelt. (A) Pseudocleavage. (B) Regressie van de cleavagesulcus terug naar de normale toestand. (C) Metafase van de eerste celdeling. (D) Anafase van de eerste celdeling. (E) Twee-celstadium. (F) Anafase van de AB-celdeling en profase van de P1-celdeling. (G) Anafase van de P1-celdeling. (H) Vier-celstadium. Schaalbalk = 10 µm. Klik hier om dit bestand te downloaden.
Aanvullende Figuur S3: Representatieve vergelijking van de klievingsgeul in vroege embryo's van N2 en de hum-2 (ok596) mutant. Het uitvergote paneel toont de dynamiek van de geul over de tijd voor visuele vergelijking. De getallen geven de tijd aan na het begin van de anafase, gedefinieerd door chromosoomsegregatie. Schaalbalk = 2 µm. Klik hier om dit bestand te downloaden.
Aanvullende video S1. Representatieve fluorescentie timelapse-beeldvorming van de gonad in de late L4-fase met behulp van NMY-2::GFP en mCherry::Histone; 30 s per frame. Klik hier om dit bestand te downloaden.
Aanvullende video S2. Representatieve brightfield timelapse-beeldvorming van volledige spermatogenese in him-5 (e1490); 30 s per frame. Klik hier om dit bestand te downloaden.
Aanvullende video S3. Representatieve fluorescentie timelapse-beeldvorming van vroege embryogenese met behulp van GFP::Histone en mCherry::PH; 30 s per frame. Klik hier om dit bestand te downloaden.
Aanvullende Video S4. Representatieve fluorescentie-timelapse-beeldvorming van de delgingsgroef in vroege embryo's van N2 en hum-2 (ok596) mutant; 15 s per frame. Klik hier om dit bestand te downloaden.
Aanvullende video S5. Representatieve brightfield timelapse-beeldvorming van de embryonale ontwikkeling van N2 C. elegans van de pronucleaire fusie van oöcyt en sperma tot de mitotische delingen die leiden tot het organisme. Klik hier om dit bestand te downloaden.
Discussie
Voor het prepareren en beelden van wormen hebben we twee workflows gestroomlijnd, respectievelijk gebaseerd op kamers en objectglazen. De op kamers gebaseerde benadering is gebruikt voor live imaging met een hoge resolutie, waardoor langdurige observatie van ontwikkelingsprocessen mogelijk is met beperkte fototoxiciteit/fotobleking53. De op objectglazen gebaseerde benadering is aangepast van standaard agarose-pad-montagetechnieken die algemeen worden gebruikt voor kortstondige observatie van neuronale activiteit en subcellulaire structuren54. We hebben beide protocollen (secties 3, 4, 5 en 6) toegepast voor langdurige observaties gedurende geselecteerde vroege ontwikkelingsstadia van C. elegans. Wat betreft de in vivo observatie van de gonadenstructuur, PGC-delingen of spermatogenese, hebben we de hoofdprocedures van eerder vastgestelde methoden gevolgd en bepaalde aanpassingen gedaan voor een snelle en eenvoudige toegang voor nieuwe onderzoekers55. Voor de in vitro observatie van spermatogenese leggen we de nadruk op de snelle herkenning van cellen die de overgang van profase naar metafase ingaan, wanneer de kernenvelope afbreekt56. Hoewel agarose-pads embryo's of wormen kunnen bufferen en gedeeltelijk stabiliseren voor in vivo imaging, verminderen ze het contrast tussen primaire spermatocyten en het objectglas. Agarose-pads worden daarom niet aanbevolen voor in vitro observatie van gedissecteerde spermatocyten; een vloeibaar medium verdient de voorkeur. Evenzo wordt bij in vitro observatie van embryogenese de nadruk gelegd op de snelle herkenning van specifieke ontwikkelingsstadia van belang.
Door de bovenstaande methoden te combineren, kunnen geselecteerde ontwikkelingsgebeurtenissen van de kiemlijn tot het embryo worden afgebeeld. Deze methoden kunnen ook worden gecombineerd met temperatuurregelingsapparatuur, zoals systemen voor snelle temperatuurverschuivingen voor live-cell imaging, waardoor experimenten gemakkelijker worden voor temperatuurgevoelige mutanten57. Op soortgelijke wijze kan immobilisatie op basis van koeling high-throughput imaging met submicronresolutie van C. elegans-populaties direct op kweekplaten mogelijk maken, waardoor de noodzaak voor chemische anesthesie of individuele manipulatie van wormen wordt verminderd terwijl de fysiologische levensvatbaarheid behouden blijft58. Daarnaast kunnen kunstmatige verstoringen, zoals RNA-interferentie14 en laserablatie59,60,61,62,63,64,65, worden gecombineerd met microscopie om ontwikkelingsresponsen en onderliggende biologische of fysische mechanismen te onderzoeken. In de toekomst kunnen microscopieworkflows verder worden verbeterd door optimalisatie van hardware, software en gebruikersspecifieke bediening33,66. Hoewel specifieke operationele details moeten worden aangepast, kunnen geselecteerde principes van dit protocol mogelijk worden aangepast aan andere kleine, beweeglijke diermodellen, zoals fruitvliegen en zebravislarven, in het bijzonder voor in vivo-observaties waarbij immobilisatie vereist is en in vitro-observaties waarbij dissectie vereist is67,68.
Beelddatasets die via protocollen van dit type zijn verkregen, kunnen ook dienen als basis voor downstream computationele of kwantitatieve analyses, mits er voldoende steekproefaantallen en gestandaardiseerde acquisitie-instellingen worden gebruikt69,70. Zo is de embryogenese van C. elegans gebruikt in studies naar cellineage-tracing71,72 en segmentatie van celmorfologie73,74,75, waarbij beide processen steunen op spatiotemporele beeldgegevens. Vanuit een mechanistisch perspectief kan beeldvorming van kernen, membranen, polariteitsgerelateerde eiwitten76,77,78 en cytoskeletgerelateerde eiwitten79,80,81 de analyse van celdeling en morfogenese ondersteunen. Kwantitatieve systeembiologie kan deze typen beeldgegevens integreren over moleculaire, cellulaire en organismische schalen82,83,84,85. In het huidige protocol moeten deze bredere toepassingen worden beschouwd als potentiële uitbreidingen en niet als resultaten die direct door de representatieve resultaten worden aangetoond.
Openbaarmakingen
De auteurs hebben geen belangenconflicten om te melden.
Dankbetuigingen
Wij zijn dankbaar aan prof. Samuel H. Chung, prof. Erin J. Cram, prof. Javier Apfeld en dr. Noa William Franklin Grooms aan de Northeastern University, en prof. Chuanfu Dong aan de Beijing Normal University voor hun technische ondersteuning. Dit werk werd financieel ondersteund door het National Natural Science Foundation Youth Project (beurs 22407016) en het National Natural Science Foundation Project (beurs 22477010) aan dr. Pei Zhang.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| U-100 insulinespuiten, 28 gauge | EasyTouch | B08589MG8D | Wormdissectie |
| Petrischalen van 35 mm | Celltreat | 229638 | Beeldkamer |
| Petrischalen van 60 mm | Fisherbrand | AS4050 | Wormcultuur |
| Agarose | Bio-Rad | 1613100 | Bereiding van agarose-pads |
| C. elegans RNAi-voedingsbibliotheek (Ahringer) | Source BioScience Ltd. | Omdat er geen brontekst is verstrekt, kan ik geen vertaling genereren. Voer aub de Engelse tekst in die u naar het Nederlands vertaald wilt hebben. | RNAi-experiment |
| C. elegans stam: GFP::histon; mCherry::PH | Caenorhabditis Genetics Center | YC0154 | Stam gebruikt in deze studie |
| C. elegans stam: GFP::HUM-2 | Sunybiotech | YC0381 | Stam gebruikt in deze studie |
| C. elegans stam: him-5 (e1490) | Caenorhabditis Genetics Center | CB4088 | Stam gebruikt in deze studie |
| C. elegans stam: N2, wild-type | Caenorhabditis Genetics Center | N2 (Bristol) | Stam gebruikt in deze studie |
| C. elegans stam: NMY-2::GFP; mCherry::histone | Caenorhabditis Genetics Center | YC0032 | Stam gebruikt in deze studie |
| C. elegans stam: PH::GFP; mCherry::histone | Caenorhabditis Genetics Center | YC0029 | Stam gebruikt in deze studie |
| Differentieel-interferentiecontrastmicroscoop (DIC-microscoop) | Olympus | BX53 | Wormbeeldvorming |
| Dissecterende stereomicroscopen | Nikon | SMZ745 | Observatie van wormen |
| E. coli OP50 | Caenorhabditis Genetics Center | OP50 | Bacteriële voedingsbron |
| Foetaal runderserum (FBS) | Helaas is er geen brontekst beschikbaar om te vertalen. Voer aub de tekst in die u vertaald wilt hebben. | N/A | Kweekbuffer |
| Vriesbuffer (S-buffer/glycerol) | Omdat er geen brontekst is verstrekt, kan ik geen vertaling produceren. Gelieve de tekst aan te leveren die vertaald moet worden. | Het is niet van toepassing. | Langetermijnbewaring |
| Hybridisatie-dekglas | Invitrogen (Thermo Fisher Scientific) | H18200 | Preparatie vanHet agarosepad/de agarosekamer |
| Isopropyl β-D-1-thiogalactopyranoside (IPTG) | Invitrogen (Thermo Fisher Scientific) | 15529019 | Wormcultuur |
| Leibovitz L-15 medium | Omdat er geen brontekst is verstrekt, kan er geen vertaling worden gemaakt. Lever a.u.b. de Engelse tekst aan die vertaald moet worden. | Omdat er geen brontekst is verstrekt, kan ik geen vertaling produceren. Voer de Engelse tekst in die u vertaald wilt hebben naar het Nederlands. | Kweekbuffer |
| Levamisolehydrochloride | Omdat er geen brontekst is verstrekt, kan ik geen vertaling produceren. Gelieve de Engelse tekst aan te leveren die vertaald moet worden naar het Nederlands. | N/A | Immobilisatie van wormen |
| M9-buffer | Omdat er geen brontekst is verstrekt, kan ik geen vertaling produceren. Voeg de Engelse tekst toe die u vertaald wilt hebben naar het Nederlands. | Omdat er geen brontekst is verstrekt, kan ik geen vertaling produceren. Raadpleeg a.u.b. de brontekst die vertaald moet worden. | Wormcultuur en montage |
| Dekglas voor microscoop | Fisherbrand | 12541016 | Objectglazen voor beeldvorming |
| Mini digitale incubator | Benchmark Scientific | BMS-H2200-HC-E | Wormkweek |
| NGM voorgemengd poeder | Kunt u de brontekst verstrekken die u vertaald wilt hebben? Zodra u de tekst uit het Engels stuurt, zal ik deze volgens uw specifieke richtlijnen vertalen naar academisch Nederlands. | Omdat er geen brontekst is verstrekt, kan ik geen vertaling produceren. Voeg de Engelse tekst toe die u vertaald wilt hebben naar het Nederlands. | Wormkweek |
| Nikon Eclipse Ti2-E omgekeerde microscoop | Nikon | Ti2-E | Wormbeeldvorming |
| Standaard objectglazen | Fisherbrand | 12550A3 | Beeldvormingspreparaten |
| Standaard objectglazen | Corning | 2947-75X25 | Voorbereiding van het agarosekussentje |
| Spinning-disk confocale microscoop | Olympus | SpinSR10 | Wormbeeldvorming |
| Spinning-disk confocale eenheid | Yokogawa | CSU-X1 | Time-lapse-beeldvorming |
| Tetramisol | Sigma-Aldrich | L9756 | Wormanesthesie |
| Vaseline | Sangon Biotech | A510146-0500 | Imagingpreparaten |
Referenties
- Corsi AK, Wightman B, Chalfie M. A transparent window into biology: a primer on Caenorhabditis elegans. Genetics. 2015;200(2):387-407.
- Ambros VR, et al. From nematode to Nobel: how community-shared resources fueled the rise of Caenorhabditis elegans as a research organism. Proc Natl Acad Sci U S A. 2025;122(48):e2522808122.
- Du Z, et al. De novo inference of systems-level mechanistic models of development from live-imaging-based phenotype analysis. Cell. 2014;156(1):359-72.
- Xiao L, et al. Defect-buffering cellular plasticity increases robustness of metazoan embryogenesis. Cell Syst. 2022;13(8):615-30.e9.
- Green RA, et al. Automated profiling of gene function during embryonic development. Cell. 2024;187(12):3141-60.e23.
- Yang M, Bai Y, Wang Z, Du Z. Intracellular buffering enables developmental robustness after genome doubling in C. elegans embryos. Cell Rep. 2026;45(3):117005.
- Laugsch M, Schierenberg E. Differences in maternal supply and early development of closely related nematode species. Int J Dev Biol. 2004;48(7):655-62.
- Guan G, Luo C, Tang HL, Tang C. Modulating cell proliferation by asymmetric division: a conserved pattern in the early embryogenesis of nematode species. MicroPubl Biol. 2024;10.17912/micropub.biology.001006.
- Large CRL, et al. Lineage-resolved analysis of embryonic gene expression evolution in C. elegans and C. briggsae. Science. 2025;388(6753):eadu8249.
- Zhang P, et al. Biosynthesis of modular signaling molecules requires functional diversification of carboxylesterases in Pristionchus pacificus. Commun Biol. 2025;8(1):1213.
- Brenner S. The genetics of Caenorhabditis elegans. Genetics. 1974;77(1):71-94.
- Sulston JE, Schierenberg E, White JG, Thomson JN. The embryonic cell lineage of the nematode Caenorhabditis elegans. Dev Biol. 1983;100(1):64-119.
- C. elegans Sequencing Consortium. Genome sequence of the nematode C. elegans: a platform for investigating biology. Science. 1998;282(5396):2012-8.
- Chung SH, et al. Femtosecond laser ablation reveals antagonistic sensory and neuroendocrine signaling that underlie C. elegans behavior and development. Cell Rep. 2013;4(2):316-26.
- Zhang H, Abraham N, Khan LA, Gobel V. RNAi-based biosynthetic pathway screens to identify in vivo functions of non-nucleic acid-based metabolites such as lipids. Nat Protoc. 2015;10(5):681-700.
- Huang X, et al. PIWI-interacting RNA expression regulates pathogenesis in a Caenorhabditis elegans model of Lewy body disease. Nat Commun. 2023;14(1):6137.
- Schnabel R, Hutter H, Moerman D, Schnabel H. Assessing normal embryogenesis in Caenorhabditis elegans using a 4D microscope: variability of development and regional specification. Dev Biol. 1997;184(2):234-65.
- Wang X, Hu B, Zhao Z, Tse YC. From primordial germ cells to spermatids in Caenorhabditis elegans. Semin Cell Dev Biol. 2022;127:110-20.
- L’Hernault SW. Spermatogenesis. In: Riddle DL, Blumenthal T, Meyer BJ, Priess JR, editors. C. elegans II. 2nd edition. Cold Spring Harbor Laboratory Press, Cold Spring Harbor, NY; 1997.
- Wang X, et al. Cortical recruitment of centralspindlin and RhoA effectors during meiosis I of Caenorhabditis elegans primary spermatocytes. J Cell Sci. 2021;134(3):jcs238543.
- Hu J, et al. Distinct roles of two myosins in C. elegans spermatid differentiation. PLoS Biol. 2019;17(4):e3000211.
- Kovacevic I, Orozco JM, Cram EJ. Filamin and phospholipase C-ε are required for calcium signaling in the Caenorhabditis elegans spermatheca. PLoS Genet. 2013;9(5):e1003510.
- Sadeghian F, Grooms NWF, Chung SH, Cram EJ. Tensions on the actin cytoskeleton and apical cell junctions in the C. elegans spermatheca are influenced by spermathecal anatomy, ovulation state and activation of myosin. Front Cell Dev Biol. 2024;12:1490803.
- Hoege C, Hyman AA. Principles of PAR polarity in Caenorhabditis elegans embryos. Nat Rev Mol Cell Biol. 2013;14(5):315-22.
- Simske JS, Hardin J. Getting into shape: epidermal morphogenesis in Caenorhabditis elegans embryos. Bioessays. 2001;23(1):12-23.
- Zhang H, Emmons SW. Regulation of the Caenorhabditis elegans posterior hox gene egl-5 by microRNA and the polycomb-like gene sop-2. Dev Dyn. 2009;238(3):595-603.
- Zhang N, et al. The C. elegans intestine as a model for intercellular lumen morphogenesis and in vivo polarized membrane biogenesis at the single-cell level: labeling by antibody staining, RNAi loss-of-function analysis and imaging. J Vis Exp. 2017;(128):e56100.
- Zhang N, et al. The C. elegans excretory canal as a model for intracellular lumen morphogenesis and in vivo polarized membrane biogenesis in a single cell: labeling by GFP-fusions, RNAi interaction screen and imaging. J Vis Exp. 2017;(128):e56101.
- Cui M, et al. A model of hereditary sensory and autonomic neuropathy type 1 reveals a role of glycosphingolipids in neuronal polarity. J Neurosci. 2019;39(29):5816-34.
- Li Z, et al. A collection of toolkit strains reveals distinct localization and dynamics of membrane-associated transcripts in epithelia. Cell Rep. 2021;35(5):109072.
- Cheng X, et al. Proteotoxic stress disrupts epithelial integrity by inducing MTOR sequestration and autophagy overactivation. Autophagy. 2022;19(1):241-55.
- Zhang P, et al. The centralspindlin complex regulates cytokinesis and morphogenesis in the C. elegans spermatheca. Development. 2023;150(2):dev200840.
- Wang YL, Grooms NWF, Civale SC, Chung SH. Confocal imaging capacity on a widefield microscope using a spatial light modulator. PLoS One. 2021;16(2):e0244034.
- Stiernagle T. Maintenance of C. elegans. WormBook. 2006;1-11.
- Hirsh D, Vanderslice R. Temperature-sensitive developmental mutants of Caenorhabditis elegans. Dev Biol. 1976;49(1):220-35.
- Davies T, et al. Using fast-acting temperature-sensitive mutants to study cell division in Caenorhabditis elegans. Methods Cell Biol. 2017;137:283-306.
- Ward S, Miwa J. Characterization of temperature-sensitive, fertilization-defective mutants of the nematode Caenorhabditis elegans. Genetics. 1978;88(2):285-303.
- Vanderslice R, Hirsh D. Temperature-sensitive zygote defective mutants of Caenorhabditis elegans. Dev Biol. 1976;49(1):236-49.
- Fujita M, Onami S. Cell-to-cell heterogeneity in cortical tension specifies curvature of contact surfaces in Caenorhabditis elegans embryos. PLoS One. 2012;7(1):e30224.
- Nishikawa M, Naganathan SR, Jülicher F, Grill SW. Controlling contractile instabilities in the actomyosin cortex. eLife. 2017;6:e19595.
- Kimble J, Hirsh D. The postembryonic cell lineages of the hermaphrodite and male gonads in Caenorhabditis elegans. Dev Biol. 1979;70(2):396-417.
- Onuaguluchi G, Igbo IN. Comparative local anaesthetic and antiarrhythmic actions of levamisole hydrochloride and lignocaine hydrochloride. Arch Int Pharmacodyn Ther. 1987;289(2):278-89.
- Schindelin J, et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 2012;9(7):676-82.
- Weisbart E, et al. CellProfiler plugins - an easy image analysis platform integration for containers and Python tools. J Microsc. 2024;296(3):227-34.
- Rueckl M, et al. SamuROI, a Python-based software tool for visualization and analysis of dynamic time series imaging at multiple spatial scales. Front Neuroinform. 2017;11:44.
- Kachur TM, Audhya A, Pilgrim DB. UNC-45 is required for NMY-2 contractile function in early embryonic polarity establishment and germline cellularization in C. elegans. Dev Biol. 2008;314(2):287-99.
- Schmutz C, Stevens J, Spang A. Functions of the novel RhoGAP proteins RGA-3 and RGA-4 in the germ line and in the early embryo of C. elegans. Development. 2007;134(19):3495-505.
- Chartier NT, et al. PAR-4/LKB1 mobilizes nonmuscle myosin through anillin to regulate C. elegans embryonic polarization and cytokinesis. Curr Biol. 2011;21(4):259-69.
- Knight AJ, Johnson NM, Behm CA. VHA-19 is essential in Caenorhabditis elegans oocytes for embryogenesis and is involved in trafficking in oocytes. PLoS One. 2012;7(7):e40317.
- Murata D, et al. GPI-anchor synthesis is indispensable for the germline development of the nematode Caenorhabditis elegans. Mol Biol Cell. 2012;23(6):982-95.
- Wong S, Weisman LS. Roles and regulation of myosin V interaction with cargo. Adv Biol Regul. 2021;79:100787.
- McLean D. Adobe Photoshop and Illustrator techniques. J Audiov Media Med. 2002;25(2):79-81.
- Gabel CV, et al. Neural circuits mediate electrosensory behavior in Caenorhabditis elegans. J Neurosci. 2007;27(28):7586-96.
- Chung SH, Sun L, Gabel CV. In vivo neuronal calcium imaging in C. elegans. J Vis Exp. 2013;(74):50357.
- McCarter J, Bartlett B, Dang T, Schedl T. On the control of oocyte meiotic maturation and ovulation in Caenorhabditis elegans. Dev Biol. 1999;205(1):111-28.
- L’Hernault SW. Spermatogenesis. WormBook. 2006;1-14.
- Pitayu-Nugroho L, et al. Kinetochore component function in C. elegans oocytes revealed by 4D tracking of holocentric chromosomes. Nat Commun. 2023;14(1):4032.
- Wang YL, et al. High-throughput submicron-resolution microscopy of Caenorhabditis elegans populations under strong immobilization by cooling cultivation plates. iScience. 2023;26(2):105999.
- Chung SH, et al. The role of the AFD neuron in C. elegans thermotaxis analyzed using femtosecond laser ablation. BMC Neurosci. 2006;7(1):30.
- Chung S, Maxwell I, Mazur E. Subcellular surgery and nanoneurosurgery [conference paper]. Presented at: Conference on Lasers and Electro-Optics; Baltimore, MD; 2007. p. 1-2.
- Chung SH, Mazur E. Femtosecond laser ablation of neurons in C. elegans for behavioral studies. Appl Phys A Mater Sci Process. 2009;96(2):335-41.
- Chung SH, Mazur E. Surgical applications of femtosecond lasers. J Biophotonics. 2009;2(10):557-72.
- Cai H, et al. Wedge prism approach for simultaneous multichannel microscopy. Sci Rep. 2019;9(1):17795.
- Chung SH, et al. Novel DLK-independent neuronal regeneration in Caenorhabditis elegans shares links with activity-dependent ectopic outgrowth. Proc Natl Acad Sci U S A. 2016;113(20):E2852-60.
- Grooms NWF, et al. Expression of thioredoxin-1 in the ASJ neuron corresponds with and enhances intrinsic regenerative capacity under lesion conditioning in C. elegans. FEBS Lett. 2023;597(14):1880-93.
- Wang YL, et al. Widefield targeted illumination microscopy enables optically-sectioned, motion-resilient imaging of neuronal fibers and their dynamics. Laser Photon Rev. 2025;19(24):e01980.
- Ghaemi R, Rezai P, Nejad FR, Selvaganapathy PR. Characterization of microfluidic clamps for immobilizing and imaging of Drosophila melanogaster larva’s central nervous system. Biomicrofluidics. 2017;11(3):034113.
- Bauer B, Mally A, Liedtke D. Zebrafish embryos and larvae as alternative animal models for toxicity testing. Int J Mol Sci. 2021;22(24):13417.
- Ho VWS, et al. Systems-level quantification of division timing reveals a common genetic architecture controlling asynchrony and fate asymmetry. Mol Syst Biol. 2015;11(6):MSB145857.
- Packer JS, et al. A lineage-resolved molecular atlas of C. elegans embryogenesis at single-cell resolution. Science. 2019;365(6459):eaax1971.
- Bao Z, et al. Automated cell lineage tracing in Caenorhabditis elegans. Proc Natl Acad Sci U S A. 2006;103(8):2707-12.
- Katzman B, Tang D, Santella A, Bao Z. AceTree: a major update and case study in the long term maintenance of open-source scientific software. BMC Bioinform. 2018;19(1):121.
- Cao J, et al. Establishment of a morphological atlas of the Caenorhabditis elegans embryo using deep-learning-based 4D segmentation. Nat Commun. 2020;11(1):6254.
- Guan G, et al. Cell lineage-resolved embryonic morphological map reveals signaling associated with cell fate and size asymmetry. Nat Commun. 2025;16(1):3700.
- Guan G, et al. EmbSAM: cell boundary localization and Segment Anything Model for fast images of developing embryos. Commun Biol. 2026;9(1):8.
- Goehring NW, et al. Polarization of PAR proteins by advective triggering of a pattern-forming system. Science. 2011;334(6059):1137-41.
- Zhang H, et al. Vesicular sorting controls the polarity of expanding membranes in the C. elegans intestine. Worm. 2013;2(1):e23702.
- Zhang H, et al. Clathrin and AP-1 regulate apical polarity and lumen formation during C. elegans tubulogenesis. Development. 2012;139(11):2071-83.
- Kajita A, Yamamura M, Kohara Y. Computer simulation of the cellular arrangement using physical model in early cleavage of the nematode Caenorhabditis elegans. Bioinformatics. 2003;19(6):704-16.
- Zhang H, et al. Apicobasal domain identities of expanding tubular membranes depend on glycosphingolipid biosynthesis. Nat Cell Biol. 2011;13(10):1189-201.
- Pimpale LG, Middelkoop TC, Mietke A, Grill SW. Cell lineage-dependent chiral actomyosin flows drive cellular rearrangements in early Caenorhabditis elegans development. eLife. 2020;9:e54930.
- Hench J, Henriksson J, Lüppert M, Bürglin TR. Spatio-temporal reference model of Caenorhabditis elegans embryogenesis with cell contact maps. Dev Biol. 2009;333(1):1-13.
- Richards JL, et al. A quantitative model of normal Caenorhabditis elegans embryogenesis and its disruption after stress. Dev Biol. 2013;374(1):12-23.
- Moore JL, Du Z, Bao Z. Systematic quantification of developmental phenotypes at single-cell resolution during embryogenesis. Development. 2013;140(15):3266-74.
- Wong MK, et al. Timing of tissue-specific cell division requires a differential onset of zygotic transcription during metazoan embryogenesis. J Biol Chem. 2016;291(24):12501-13.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar