Er worden twee contactloze co-culturebenaderingen beschreven voor de kwalitatieve en kwantitatieve beoordeling van morfologische reacties van schimmels tijdens interspecifieke interacties. Het protocol demonstreert hoe intrinsieke factoren de hyfengroei beïnvloeden, met een interspecifieke Candida-assay als voorbeeld. Deze methoden kunnen eenvoudig worden aangepast om microbiële interspecifieke communicatie tussen diverse organismen te onderzoeken.
Methodenartikel
Contactloze co-cultuurassays voor morfometrische studies tijdens interspecifieke interacties bij schimmels
In dit artikel
Samenvatting
Samenvatting
Cellulair gedrag en morfologie worden in een microbiële gemeenschap doorgaans beïnvloed door diverse intra- en extracellulaire factoren. De verschillende beschikbare benaderingen om microbiële communicatie te bestuderen kunnen tijdrovend zijn en/of gespecialiseerde faciliteiten en expertise vereisen. Hier worden twee complementaire contactloze co-culturebenaderingen beschreven, de co-cultureassay met membraaninsert-wellplates en de assay op basis van celvrij supernatant (CFS), die gebaseerd zijn op morfologische transitie als meetbare respons om de rol van diverse factoren in een gegeven interspecies-interactie te onderzoeken. Het membraaninsert-wellplatesysteem staat de diffusie van extracellulaire moleculen toe en maakt realtime interactie tussen fysiek gescheiden soorten mogelijk. In vergelijking hiermee biedt de CFS-gebaseerde assay een vereenvoudigde, schaalbare benadering voor het evalueren van responsen op geconditioneerde media. Het hier gepresenteerde protocol bevat gestandaardiseerde procedures voor cultuurpreparatie, het genereren van geconditioneerde supernatanten, de opzet van de assay, microscopie, beeldverwerving, kwantitatieve morfometrische analyse met Fiji en statistische evaluatie. Dit is gedemonstreerd aan een voorbeeld van de morfologische respons van schimmels op intrinsieke en extrinsieke factoren. De hier gepresenteerde methoden bieden toegankelijke en aanpasbare alternatieve instrumenten voor het bestuderen van nieuwe microbiële interacties in een gemeenschap en kunnen eenvoudig worden uitgebreid om mechanismen die ten grondslag liggen aan multi-species co-existentie in een gemeenschap te onderzoeken.
Inleiding
In natuurlijke en klinische ecosystemen verblijven micro-organismen doorgaans binnen gestructureerde polymicrobiële gemeenschappen, die worden beheerst door complexe netwerken van intra- en intersoortelijke communicatie1. Deze consortia maken gebruik van diverse chemische signalen, waaronder quorum-sensing-moleculen, vluchtige organische stoffen en secretoire peptiden en eiwitten, om gedragingen op populatieniveau te coördineren2. Het in kaart brengen van deze communicatiedynamiek is cruciaal, aangezien coöperatieve, competitieve of predatore interacties in een niche het microbiële metabolisme, de ruimtelijke architectuur en de stressadaptatie aanzienlijk beïnvloeden3. Klinisch gezien vertonen deze polymicrobiële netwerken (zoals duale bacteriële-schimmel- of intersoortelijke schimmel-schimmelconsortia) vaak een synergetische virulentie, versnelde weefselkolonisatie en een verhoogde antimicrobiële resistentie in vergelijking met monocultures4,5. Het ontcijferen van de moleculaire determinanten van microbiële communicatie is daarom essentieel om traditionele modellen te overstijgen en innovatieve anti-infectieve strategieën te ontwikkelen om de stabiliteit van de gemeenschap te verstoren6.
Om verschillende modi van microbiële communicatie te ontleden, maken onderzoekers gebruik van diverse experimentele configuraties, die primair worden toegepast in de zoogdiercelbiologie, immunologie en oncologie7,8,9. Zo dienen direct-contact co-cultuurmodellen als standaard voor het onderzoeken van juxtacriene signalering en fysieke cel-cel interacties10. Vergelijkbare opstellingen met modificaties worden ook gebruikt om fysieke interacties tussen microben te bestuderen, om cross-microbiële inhibitie of drugrespons te begrijpen9,11,12. Het is echter moeilijk om de onderliggende mechanismen te onderscheiden, omdat zowel contactafhankelijke als diffuseerbare signalen bijdragen aan de waargenomen respons. Hoewel traditionele contactgebaseerde assays ruimtelijke inzichten kunnen bieden, zijn ze arbeidsintensief en/of vereisen ze specifieke stamlabeling, wat tijdrovend kan zijn voor niet-modelorganismen. Omgekeerd worden Transwell-assays (membraaninsert-wellplaten), voornamelijk in zoogdierstudies, gebruikt om de bijdragen van contactafhankelijke en diffuseerbare signalen te onderscheiden13,14,15,16. Deze methode is bijzonder nuttig wanneer cellulaire communicatie wordt gemedieerd door uitgescheiden moleculen, wat real-time analyse van signaleringsdynamiek tussen celpopulaties mogelijk maakt17. Bovendien bieden contactvrije assays het voordeel van membraanscheiding, wat ook integratie van experimenten met computationele modellen mogelijk maakt om microben dynamisch te volgen die traditionele methoden missen18. Deze benadering wordt incidenteel gebruikt om gelijktijdig de ontwikkelingskinetiek van verschillende bacteriële soorten te bestuderen19.
Een goedkoper high-throughput alternatief voor de assay met membraan-insert wellplates is de assay op basis van celvrij supernatant (CFS) of geconditioneerd medium. Dit wordt gebruikt in de regeneratieve geneeskunde en vasculaire biologie om secretomen te isoleren die nodig zijn voor het begrijpen van stamcel-gemedieerde weefselherstel en/of tumor-geïnduceerde angiogenese20. Op vergelijkbare wijze zijn CFS-kaders in microbiële studies nuttig geweest bij het ontcijferen van polymicrobiële competitie. Zo zijn bacteriële filtraten (zoals Pseudomonas aeruginosa acyl-homoserine lactonen of Lactobacillus metabolieten) gebruikt om de rijping van schimmelbiofilms te moduleren21,22. Onlangs hebben microfluïdische platforms hoogwaardige fysiologische biomimicry mogelijk gemaakt via organ-on-a-chip technologieën23,24. Hoewel microfluïdische systemen zijn geïmplementeerd voor de gelijktijdige detectie van de respons van de microbiële gemeenschap op hun secretomen, vereisen ze gespecialiseerde instrumentatie en expertise en kunnen ze wellicht niet gemakkelijk in alle omgevingen worden toegepast25,26,27. Daarom blijken assays met membraan-insert wellplates en CFS-gebaseerde assays in de meeste gevallen de voorkeursmethoden te zijn. De keuze tussen deze twee assays hangt af van de aard van het secretiemolecuul. Als het secretiemolecuul onstabiel is, oftewel een korte halfwaardetijd heeft, en real-time activiteit gemeten moet worden, is de assay met membraan-insert wellplates geschikter. Aan de andere kant, als het secretiemolecuul stabiel is en het experiment op grote schaal wordt uitgevoerd, is een CFS-gebaseerde assay economischer.
Het hoofddoel van dit protocol is het presenteren van een stapsgewijze kwalitatieve en kwantitatieve trackingmethode voor het evalueren van morfologische kenmerken, met gebruik van de membraaninsert-wellplaat en CFS-platforms (Figuur 1). Hier is dit gedemonstreerd aan de hand van communicatie via uitgescheiden factoren tussen Candida albicans en Candida glabrata als voorbeeld. Daarnaast kunnen deze instrumenten ook de effecten van intrinsieke genetische variabelen (ploidie en paringslocusstatus) kwantificeren bij het wijzigen van de absolute geometrische ontwikkeling (lengte, volume en diameter) van C. albicans filamenten bij blootstelling aan secretoire signaalmoleculen. Dit gevestigde protocol biedt een eenvoudig en betaalbaar contactloos platform, dat geschikt is voor het bestuderen van interspecies-signaleringsdynamiek.
Protocol
Zowel C. albicans als C. glabrata zijn geclassificeerd als opportunistische menselijke pathogenen van biologisch veiligheidsniveau 2 (BSL-2). Alle experimentele stappen moeten worden uitgevoerd in gecertificeerde veiligheidskasten onder strikte naleving van Goede Microbiologische Praktijken (GMP) en institutionele inperkingsprocedures. Persoonlijke beschermingsmiddelen (PBM), waaronder laboratoriumjassen, dubbele handschoenen en beschermende oogvijzers, moeten gedurende het gehele proces worden gedragen. Alle besmette verbruiksartikelen, plasticware en vloeibare culturen moeten worden onderworpen aan gevalideerde autoclavering (121 °C, 15 psi, gedurende 20 min) of chemische desinfectie met een vers bereide 10% natriumhypochlorietoplossing vóór definitieve afvoer (Aanbevolen: National Institutes of Health (NIH) Waste Disposal Guide 2022). Alle standaardreagentia, chemicaliën van analytische graad en apparatuur die in deze methodologie worden gebruikt, zijn beschreven in de Tabel met Materialen. Eigenschappen van de schimmelstammen en achtergrondgenotypes zijn gedetailleerd in Tabel 1. De lijst met in deze studie gebruikte media, inclusief hun samenstellingen, is opgenomen in Aanvullend Bestand 1.
1. Bereiding van celvrij supernatant (CFS)
- Initiatie en incubatie van de cultuur
- Neem met een steriele plastic ooglus een enkele geïsoleerde kolonie van C. glabrata CBS138 die vers is gegroeid op een Glucose Minimal Medium (GMM) agarplaat28. Inoculeer de kolonie in een steriele glazen buis met 10 mL standaard Yeast Peptone Dextrose (YPD) bouillon (1% w/v gistextract, 2% w/v peptone, 2% w/v D-glucose)29.
- Plaats de buis in een schudincubator. Incubeer de cultuur bij een vaste temperatuur van 37 °C met continue agitatie op 200 rpm gedurende 18 h.
- Verifieer dat de cultuur uniform in de late stationaire groeifase is getreden door te controleren of de optische densiteit (OD600) binnen een stabiele range van 12,0 tot 14,0 valt. Controleer de cellen onder een microscoop om te bevestigen dat de cellen in gistvorm zijn en vrij zijn van contaminatie. Dit ontwikkelingsvenster is vereist om een optimale accumulatie van stabiele extracellulaire secretomecomponenten te waarborgen.
- Celscheiding en filtratie
- Overbreng de 18-uurs C. glabrata vloeibare cultuur aseptisch naar een steriele conische polypropylene centrifugebuis van 15 mL.
- Balanceer de buizen en centrifugeer de cultuur op 5.000 x g gedurende exact 5 min bij een gecontroleerde kamertemperatuur van 25 °C om de biomassa samen te persen tot een compacte pellet.
- Giet het ruwe vloeibare supernatant in een schone, steriele plastic spuit van 20 mL. Bevestig de spuit voorzichtig aan een steriel 0,22 µm Polyethersulfone (PES) membraanfilter met lage eiwitbinding.
- Oefen een gestage mechanische druk uit om de vloeistof door het PES-filter in een steriele opvangbuis van 15 mL te leiden, waardoor het werkbare Celvrije Supernatant (CFS) wordt gegenereerd. Als er tijdens de filtratie weerstand voelbaar is, oefen dan geen overmatige druk uit, omdat dit kan leiden tot het scheuren van het membraan. Gebruik in dergelijke gevallen een nieuw membraanfilter.
OPMERKING: Stel het vers geoogste CFS niet bloot aan snelle vries-dooi-cycli of bewaartemperaturen onder 4 °C vóór het opzetten van de assay, aangezien koude precipitatie laag-abundante proteïnefactoren kan destabiliseren. - Bewaar de gecomprimeerde doelcelpellet in de oorspronkelijke opvangbuis indien u direct overgaat naar het bijbehorende co-cultuurexperiment in een membrane insert wellplaat (Stap 4).
2. Bereiding van het Candida albicans-inoculum voor hyfale inductie-assays
- Bereiding en onderhoud van het inoculum
- Haal de doelsuinen van C. albicans (zie Tabel 1 voor genotypen) direct uit de master glycerolvoorraden voor langetermijnbewaring bij -80 °C. Uitplaat de cellen op vaste GMM-platen (0,67% w/v yeast nitrogen base zonder aminozuren, 2% w/v D-glucose, 2% w/v agar) om werkkolonies te vormen.
- Voor diploïde stammen (SC5314, RBY1132, RBY1133): Inoculeer een enkele kolonie in 5 mL vloeibaar GMM. Incubeer de buis gedurende 12 h bij 37 °C onder constante agitatie bij 200 rpm.
OPMERKING: Het gebruik van minimaal medium (GMM) voor de overnight-bereiding van diploïde cellen is essentieel om spontane auto-filamentatie te onderdrukken, wat vaak voorkomt in nutriëntenrijke media. - Voor haploïde stammen (GZY896, GZY803): Inoculeer een geïsoleerde kolonie in 5 mL vloeibare YPD-bouillon aangevuld met 0,1 mg/mL uridine (YPDU). Incubeer de buis gedurende 12 h bij 37 °C met continue agitatie bij 200 rpm.
- Om de morfologische stabiliteit te behouden en consistentie te waarborgen, mogen opeenvolgende vloeibare subculturen worden beperkt tot maximaal drie passages. Als auto-filamentatie of pseudohyfale clustering 2% overschrijdt in de startcontrolepool, gooi dan de stam weg en activeer verse cellen uit de master freeze-voorraden.
- Normalisatie
- Pipetteer 1 mL van de overnight vloeibare culturen in steriele cuvetten. Meet de precieze absorbentie bij 600 nm (OD600) met een gekalibreerde UV-Vis spectrophotometer, waarbij verse GMM- of YPDU-bouillon als blanco controle wordt gebruikt.
OPMERKING: De OD600 (celdichtheid) van de overnight vloeibare culturen, vooral die in YPDU zijn gekweekt, kan het gevoeligheidsbereik van de spectrophotometer overschrijden. Verdun in dergelijke scenario's de culturen geschikte (10–20-voudig) voordat de metingen worden uitgevoerd. - Bereken het volume dichte cultuur dat nodig is om een gestandaardiseerde doelsuspensie te genereren. Verdun de cellen met voorverwarmd (37 °C) vloeibaar GMM in een steriele buis om een werkinoculum van 1 mL te verkrijgen, aangepast naar een absolute uiteindelijke OD600 = 0,1.
- Pipetteer 1 mL van de overnight vloeibare culturen in steriele cuvetten. Meet de precieze absorbentie bij 600 nm (OD600) met een gekalibreerde UV-Vis spectrophotometer, waarbij verse GMM- of YPDU-bouillon als blanco controle wordt gebruikt.
3. Assay voor hyfale inductie op basis van CFS (formaat 96-wells plaat)
- Opzet van de assay
- Gebruik een steriele, optisch heldere 96-well polystyrene microtiterplaat met een vlakke bodem.
- Configuratie van de testwells: Dispenseer 45 µL van het vers gefiltreerde C. glabrata CFS (uit stap 1.2.4) direct in de aangewezen testwells. Voeg 45 µL steriel GMM-bouillon toe (of YPDU-bouillon bij evaluatie van haploïde doelstammen).
- Negatieve mediacontroles: Voeg 90 µL GMM-bouillon toe aan de controlewells. Meng daarnaast in een aparte well 45 µL steriele GMM-bouillon met 45 µL blanco niet-geïnoculeerde YPD-bouillon om de baseline achtergrondcomponenten van het medium te monitoren.
- Positieve inductiecontroles: Voeg 80 µL GMM-bouillon toe gecombineerd met 10 µL Fetal Bovine Serum (FBS; uiteindelijke concentratie van 10% v/v).
- Inoculatie: Dispenseer precies 10 µL van het genormaliseerde OD600 = 0.1 C. albicans werkinoculum (uit stap 2.2.2) in 90 µL van het geschikte medium in alle experimentele wells en controlewells.
- Incubatie en gegevensverzameling
- Dek de 96-well plaat af met het bijbehorende plastic deksel om verdamping te minimaliseren. Plaats de plaat in een statische incubator bij 37 °C voor precies 3 h. Vermijd het verschuiven of schudden van de plaat tijdens dit interval om een stabiele filamentatie mogelijk te maken.
- Plaats de multi-well plaat na incubatie rechtop op de tafel van een omgekeerde lichtmicroscoop die is uitgerust met bright-field optiek en een geïntegreerde digitale CCD-cameramodule.
- Leg systematisch geautomatiseerde of handmatige beelden vast over ten minste vijf verschillende gezichtsvelden per well.
- Voer deze assayconfiguratie uit met duidelijke technische duplicaten per conditie, over ten minste drie volledig onafhankelijke biologische replica's die op verschillende dagen zijn voorbereid.
4. Co-cultuuranalyse met membraaninsert-wellplaat
- Opstelling van het abluminale (onderste) compartiment
- Neem een steriele 24-well weefselkweekplaat.
- Dispenseer precies 1,0 mL van de genormaliseerde OD600 = 0,1 C. albicans-cel suspensie (uit stap 2.2.2) in de onderste abluminale kamers.
- Opstelling van het luminale (bovenste) compartiment
- Neem de C. glabrata-celpellet die tijdens stap 1.2.5 is apartgezet. Resuspendeer de pellet in 1 mL steriel GMM-bouillon, centrifugeer bij 5000 x g gedurende 3 min en giet de vloeistof af. Herhaal deze wasstap tweemaal om residuele nutriëntencomponenten of oude mediumelementen te verwijderen.
- Resuspendeer de uiteindelijke gewassen pellet in verse GMM-bouillon en stel de uiteindelijke optische dichtheid in op een hoog geconcentreerde waarde van OD600 = 5,0.
- Pak met een steriele pincet een steriele membraan-well insert met een track-etched polycarbonaatmembraan met een poriegrootte van 0,4 µm. Plaats de insert voorzichtig in de bezette kamer van de 24-well plaat, waarbij de bovenste flensen in de middelste inkepingen worden vastgezet.
- Dispenseer precies 750 µL van de geconcentreerde C. glabrata-cultuur met OD600 = 5,0 in de bovenste luminale insertkamer.
OPMERKING: Het handhaven van een initiële celverhouding van ongeveer 1:50 (C. albicans ten opzichte van C. glabrata) over de membraanbarrière zorgt voor een voldoende accumulatie van signaleringsliganden, terwijl lokale feedback-artefacten worden voorkomen.
- Incubatie en imaging
- Dek de samengestelde membraan-insert-wellplaat samenstelling af en incubeer statisch of met een zachte orbitale schudbeweging (30 rpm) bij 37 °C gedurende precies 3 u.
- Gebruik na incubatie een steriele pincet om de bovenste luminale insert voorzichtig uit elke well op te tillen en te verwijderen. Gooi de inserts weg in het biohazard-afval.
OPMERKING: Volledige verwijdering van het bovenste insertmembraan vóór imaging is vereist om refractieschaduwen, lichtverstrooiingspatronen en achtergrondraster-artefacten tijdens high-resolution microscopische screening te elimineren. - Plaats de 24-well plaat op de tafel van de omgekeerde microscoop voor morfologische evaluatie. In deze studie is een omgekeerde microscoop gebruikt met een 10x/0,30NA, 20x/0,50NA, of een extra lange werkafstand 40x/0,60NA objectief, met een DIC-filterset.
5. Hoge-resolutiemicroscopie en digitale beeldanalyse
- Digitale beeldacquisitie
- Scan de bodem van de wells met een objectief van 10x bij een lage vergroting om een uniforme celverdeling te verifiëren en eventuele lokale trackingfouten of afwijkende celaggregatie te signaleren.
- Leg minimaal 10 afzonderlijke gezichtsvelden vast met behulp van een gekalibreerde 20x objectieflens. Deze beelden vormen de kerngegevensset voor het bijhouden van standaard filamentaantallen en populatiedistributies.
- Voor een nauwkeurige fenotypische analyse en gedetailleerde metingen van celgrenzen worden micrografieën vastgelegd met een configuratie van een objectief met 40x vergroting en extra lange werkafstand. Bewaar alle ruwe beeldbestanden.
- Kwantitatieve fenotyperingspipeline (Fiji)
- Start de Fiji (versie 1.54p of hoger) verwerkingssoftware. Open de doelmicrografie door te navigeren naar Bestand > Open of door het bestand rechtstreeks naar de Fiji bedieningspaneel
- Tracking van hyfelenghte (L): Klik met de rechtermuisknop op het pictogram voor lijnselectie in het hoofdmenu Fiji werkbalk en selecteer de Gesectioneerd Lijngereedschap via het vervolgkeuzemenu. Plaats de cursor op het exacte junctiepunt waar de bewegende filament uit de celwandgrens van de moedergistcel tevoorschijn komt.
- Klik continu met de linkermuisknop om de centrale longitudinale as van de hyfe te volgen, waarbij ankerpunten worden geplaatst om eventuele krommingen of buigingen te corrigeren, en beëindig de lijn bij de absolute apicale tip. Klik op Meten om de lengte in micrometers te registreren (µm). Druk op Ctrl+M (Windows) of Cmd+M (Mac OS) om de totale lengte (L) in micrometers (µm) binnen het resultatenvenster.
- Om dubbele metingen van dezelfde filament te voorkomen, gebruikt u de ingebouwde ‘Brush Tool’ om elke voltooide cel te markeren.
- Profilering van de moedergistcel: Lokaliseer het bijbehorende lichaam van de moedergistcel dat correspondeert met de eerder gevolgde hyfale filament. Gebruik de Gesegmenteerd lijngereedschap trek een rechte lijn over de maximale lengteas van het cellichaam om de maximale lengteas te meten (hoofdas, gedefinieerd als variabele 'a') en voer de Meten Opdracht.
- Trek een secundaire lijn strikt loodrecht op de hoofdas over de breedste transversale overspanning van het cellichaam om de bijbehorende loodrechte dwarsas (nevenas, gedefinieerd als variabele ‘b’) te meten en voer de Meten Commando.
- Bereken het totale volume van de moedergistcel (CV, uitgedrukt in kubieke micrometers, µm3) door het toepassen van het standaard geometrische model voor een prolate sferoïde met behulp van de geregistreerde variabelen voor 'a' en 'b': CV = 4/3 π ab2.
- Structurele dikte van de hyfen (d): Selecteer de Gesegmenteerde lijntoolMeet de afstand van buitenmuur tot buitenmuur d.w.z. een lijn die loodrecht op de lengteas is getrokken. Voer deze metingen uit op drie afzonderlijke, equidistant gelegen punten langs de lengte van de filament om rekening te houden met natuurlijke structurele variaties, en registreer elke meting. via de Meten commando
- Bereken het rekenkundig gemiddelde van deze drie afzonderlijke datapunten om een nauwkeurige gemiddelde diktewaarde (d) te bepalen. Deel deze berekende gemiddelde diameterwaarde door twee om de structurele variabele straal te bepalen (r = d/2).
- Bereken het totale volume van de hyfale filament (HV, uitgedrukt in µm3) door de filament te behandelen als een onvertakte, regelmatige geometrische cilinder. Pas de gevolgde filamentlengte (L) en de afgeleide structurele straal (r) toe op het volgende berekeningsmodel: HV = π Het lijkt erop dat u alleen de letter "r" heeft ingevoerd. Kunt u de brontekst verstrekken die u vertaald wilt hebben?2 L.
6. Statistische opzet
- Biologische replica's
- Voer alle individuele testopstellingen uit in ten minste drie onafhankelijke biologische runs met verse, afzonderlijk bereide startculturen.
- Wijs binnen elke biologische run een minimum van twee identieke technische wells per conditie toe om rekening te houden met lokale randeffecten van de well of variaties in het pipetteren.
- Definiëren van de experimentele eenheid: Om statistische validiteit te waarborgen en artefacten te vermijden, moeten minimaal drie technische herhalingen per experiment worden opgenomen. Individuele cellen die binnen één well worden gemeten, vormen technische submonsters; op dezelfde manier komen drie van dergelijke wells overeen met drie technische replica's. Evenzo worden drie biologische replica's (onafhankelijke experimenten) gesuggereerd voor elk monster (N = 3).
- Meet voor elke afzonderlijke conditie binnen een biologische run willekeurig tussen de 50 en 100 individuele cellen over meerdere gezichtsvelden. Bereken voor elke biologische replica de gemiddelde of mediane waarde van deze celmetingen. Gebruik deze gemiddelde of mediane waarden van de biologische replica's voor alle daaropvolgende vergelijkende statistische tests.
- Distributieprofilering en hypothesetoetsing
- Onderwerp de datasets van de biologische replica's aan een normaliteitstoetsing met behulp van de Shapiro-Wilk- of D’Agostino-Pearson-tests voor normaliteit voordat parametrische methoden (bijv. vergelijking van gemiddelden) worden toegepast.
- Vergelijkingen tussen twee groepen: Bij het direct vergelijken van een enkele testgroep met een enkele controlegroep (bijv. groei van wild-type C. albicans in puur medium versus groei in geïsoleerd C. glabrata CFS), wordt een ongepaarde, tweezijdige Student's t-test toegepast, mits de dataset een normale verdeling volgt.
- Indien de gegevens significant afwijken van een normale verdeling, stap dan over op een non-parametrisch alternatief, zoals de Mann-Whitney U-test (Wilcoxon rank-sum test), die mediane waarden van gerangschikte gegevens vergelijkt en niet afhankelijk is van de absolute waarden van de gegevens. De non-parametrische tests staan erom bekend dat ze ongevoelig zijn voor uitschieters.
- Evaluaties van meerdere groepen: Bij het gelijktijdig beoordelen van drie of meer genetische lijnen of behandelcombinaties (bijv. het volgen van morfologische variaties over MATa/a, MATα/α en MATa/α stammen), wordt een standaard eenweg-variantieanalyse (ANOVA) uitgevoerd, gevolgd door de post-hoc test van Tukey voor meerdere paarsgewijze vergelijkingen. Indien de normaliteitstoets wordt geschonden, wordt het parametrische kader vervangen door een non-parametrische Kruskal-Wallis-test, gevolgd door een post-hoc meervoudige vergelijkingsanalyse van Dunn.
- Grafische weergave en datavisualisatie: Voer alle statistische analyses en grafische weergaven uit met statistische en grafische software.
OPMERKING: Equivalente software kan worden gebruikt voor het uitvoeren van statistische analyses en het voorbereiden van grafische weergaven. Gegevens van de membrane insert well plate en CFS-assays kunnen worden weergegeven met kolom-scatterplots, jitter-violinplots of jitter-boxplots, die de mediaan (centrale lijn) en het 95% BI (gebruikt in deze studie), of de mediaan (centrale lijn) en het eerste en derde kwartiel ( respectievelijk bovenste en onderste lijn) weergeven. - Stel de drempelwaarde voor formele statistische significantie vast op een alfaniveau van p < 0,05. Handhaaf conventionele notatieconfiguraties in alle gegenereerde datafiguren en tabellen. Bijvoorbeeld: ns: p > 0,05; *: p < 0,05; **: p < 0,01; ***: p < 0,001; ****: p < 0,0001.
Resultaten
Contactloze co-cultuurassays om intersoortelijke interacties te onderzoeken
Oplosbare, in lage concentratie voorkomende extracellulaire signaleringsmoleculen bemiddelen vaak cruciale communicatiegebeurtenissen tijdens gemengde microbiële cohabitatie. Dergelijke dynamieken werden geëvalueerd met behulp van twee contactloze celgebaseerde opstellingen, ontworpen om interactiepatronen tussen C. albicans en C. glabrata te analyseren, terwijl direct fysiek cel-tot-celcontact werd voorkomen. De eerste configuratie maakte gebruik van een geïntegreerd membraan-insert wellplate-cultuursysteem, waarbij de twee populaties fysiek werden gescheiden door een inert, 0,4 µm poreus polycarbonaatmembraan, wat ongehinderde bidirectionele diffusie van gesecreteerde moleculen over de barrière mogelijk maakte. De tweede opstelling bewaakte de groei van C. albicans-gistcellen die direct werden gekweekt in microtiterplaten met celvrij supernatant geoogst uit C. glabrata-culturen in de stationaire fase (CgCFS).
In overeenstemming met de eerdere screens30, ontwikkelden wild-type heterozygote diploïde C. albicans-cellen (SC5314) gemakkelijk echte hyfen als reactie op zowel C. glabrata-cellen die gescheiden waren door de membraaninsert-barrière als op het gefilterde CgCFS. Daarentegen bleven cellen die werden aangehouden in puur negatief controlemedium (GMM of YPD) voornamelijk in de budding-gist- en pseudohyfale vorm (Figuur 2A). De vergelijkende analyses toonden consistentie aan tussen de twee assay-opstellingen. Beide assays leverden vergelijkbare waarden op voor alle structurele metrieken, inclusief filamentlengte, volume en dikte (Figuur 2). Het verschil in morfologische parameters werd als significant beschouwd als de p-waarde van de toepasbare statistische tests, gevolgd door post-hoc tests voor meervoudige vergelijkingen, voldeed aan het criterium van 0,05. Deze observaties toonden aan dat C. albicans-cellen geen significant verschil vertoonden in de lengte van de echte hyfen, geïnduceerd door C. glabrata-cellen binnen de membraaninsert well plate opstelling (39,66 µm ± 6,81 µm) of bij blootstelling aan het gefilterde CgCFS (37,13 µm ± 6,50 µm; Figuur 2B). Vergelijkbaar waren de volumes van deze geïnduceerde filamenten in het membraaninsert well plate systeem (112,10 µm3± 22,59 µm3) eveneens niet significant verschillend van die in het CgCFS-geconditioneerde medium (109,78 µm3± 34,69 µm3; Figuur 2C). Bovendien bevestigden metingen van de filamentdiameter dat de gemiddelde hyfendikte consistent bleef tussen de twee opstellingen, met waarden van 1,89 ± 0,10 µm voor de membraaninsert well plate configuratie en 1,92 µm ± 0,23 µm voor de CgCFS-behandeling (Figuur 2D).
Ploidie-toestanden en paringstype-configuraties veranderen de in vitro morfologische afmetingen
De rollen van ploidieniveaus en de architectuur van paringsloci bij het sturen van dimorfe overgangen zijn vastgesteld in verschillende schimmelmodelsystemen. Hier is de analytische trackingpipeline toegepast om filamentatiemetrieken te kwantificeren, specifiek de hyfelengte, het structurele volume, de dikte en het bijbehorende volume van de moedergistcel, over een panel van haploïde (MATa of MATα) en diploïde (MATa/a, MATα/α, of MATa/α) C. albicans stammen.
Structurele profilering onthulde dat bij blootstelling aan zowel het inducerende CgCFS-secretoom als de positieve serumcontrole, de homozygote diploïde alfa-stam (MATα/α) filamenten vormde met significant langere assen (45,56 µm ± 9,24 µm en 46,62 µm ± 9,07 µm) en een groter volume (125,24 µm3 ± 39,94 µm3 en 119,45 µm3 ± 37,32 µm3), vergeleken met de homozygote diploïde MATa/a-stam (Figuur 3A,C). Hoewel standaard klinische isolaten van C. albicans voornamelijk voorkomen als heterozygote diploïden, vertoonde de referentie-MATa/α-stam na inductie (met name met serum) langere filamenten en grotere volumes ten opzichte van de MATa/a-stam. Deze waren echter significant kleiner dan die van de homozygote MATα/α-stam (Figuur 3B,D).
Tegelijkertijd vertoonden de haploïde stammen een omgekeerd patroon, waarbij de haploïde MATa stam een significante toename in hyfLengte vertoonde vergeleken met de haploïde MATα stam onder beide inductiecondities (CgCFS: 22,06 µm ± 5,41 µm tegenover 17,58 µm ± 4,12 µm; Serum: 23,71 µm ± 6,59 µm tegenover 21,00 µm ± 5,29 µm; Figuur 4A). Interessant is dat deze toename in lengte binnen de haploïde achtergrond vertaalde naar een toename in hyfvolume (38,84 µm3 ± 19,58 µm3 tegenover 34,25 µm3 ± 19,62 µm3) uitsluitend als reactie op CgCFS (Figuur 4B). Deze initiële in vitro metingen suggereren een complexe interactie tussen ploidietoestanden en configuraties van de mating-type locus, wat erop wijst dat de MATa en MATα loci waarschijnlijk verschillend bijdragen aan de filamentatiedynamiek.
Om de statistische relaties tussen deze structurele metrieken over de gecombineerde datasets te bestuderen, werden Spearman-rangcorrelatie (ρ) en Pearson-lineaire regressie (R2) analyses uitgevoerd, waarbij alle geteste ploidie- en paringstype-varianten waren inbegrepen. Er werden positieve correlaties waargenomen voor alle geanalyseerde paren: hyfenzengte versus hyfenvolume, hyfenzengte versus hyfendikte, hyfenzengte versus volume van de moedercel en totaal hyfenvolume versus volume van de moedergistcel (Figuur 5, Aanvullende Tabel 1 en Aanvullende Tabel 2).
De sterkste relatie werd waargenomen tussen de hyfelenlengte en het berekende hyfenevolume (ρ = 0,91; Figuur 5A). Omgekeerd was de zwakste correlatie die tussen het startvolume van de moedergistcel en het volume van de uitstulpende hyfe (ρ = 0,63; Figuur 5C). Daarnaast correleerde de hyfendikte minder sterk met de hyfelenlengte dan het hyfenvolume dat deed (Figuur 5A,D). Het volume van de moedercel, de hyfelenlengte en de hyfendikte vertoonden geen statistisch significante verschillen in hun correlaties (Figuur 5B,D). Deze geometrische distributies suggereren dat een groter initieel volume van de moedergistcel niet noodzakelijkerwijs leidt tot langere hyfen of een hoger volume.
Samenvattend tonen deze resultaten het nut aan van zowel de membraaninsert-wellplaat als de CFS-gebaseerde assays voor het visualiseren en kwantificeren van morfogenetische variaties in C. albicans zonder enig fysiek contact. De gegevens die met dit protocol zijn gegenereerd, onthullen verschillende morfologische kenmerken over verschillende ploidie-achtergronden en parings-typeconfiguraties heen. Deze contactloze assay-opstellingen bieden een flexibele, schaalbare methodologie die kan worden aangepast om interspecies-signaleringsdynamiek te onderzoeken bij diverse microbiële combinaties.
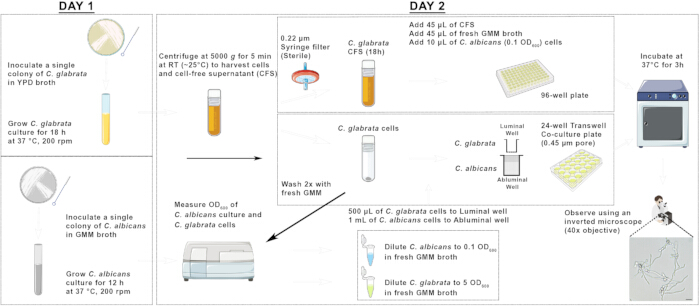
Figuur 1: Een schematische weergave van de co-culture in een wellplaat met membraan-inserts en de CFS-gebaseerde assays voor hyfale inductie met Candida soorten. Klik hier om een grotere versie van deze figuur te bekijken.
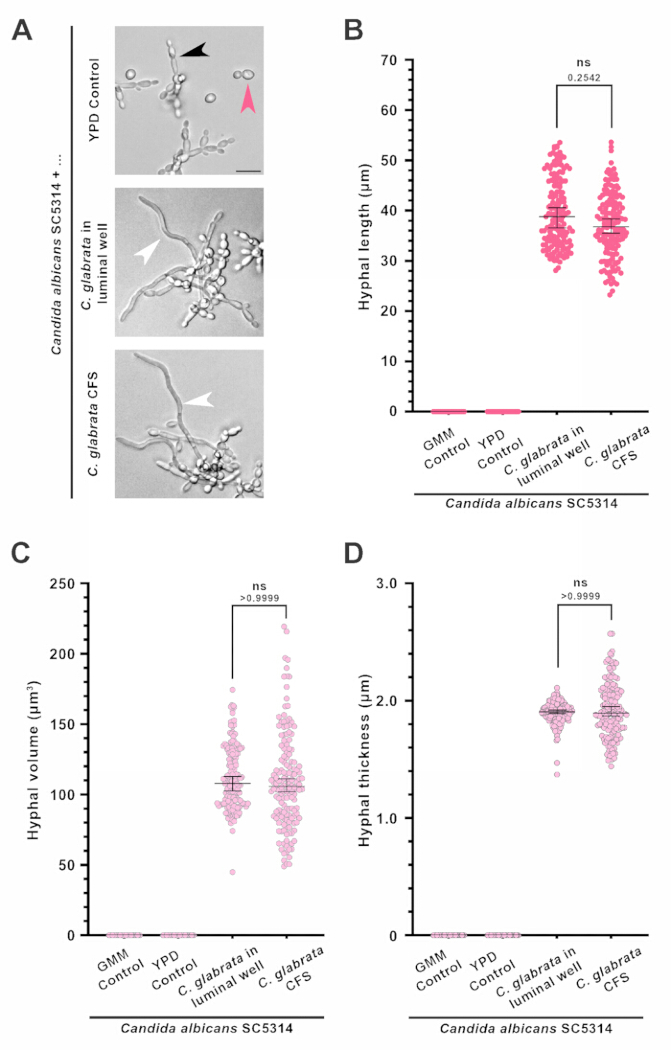
Figuur 2: Vergelijking van hyfale morfologieën waargenomen tussen de membrane insert well plate en CFS-gebaseerde contactloze assays. (A) Representatieve bright-field micrografieën die de morfologische respons van C. albicans tonen op YPD (controle), C. glabrata in een membrane insert well plate-opstelling, of op het medium geconditioneerd met het celvrije supernatant (CFS) van C. glabrata. Roze, zwarte en witte pijltjes duiden respectievelijk de gist, pseudohyfen en echte hyfen aan. Schaalbalk, 10 µm. Hyfale lengtes (B), hyfale volumes (C) en hyfale dikte (D) van een heterozygote diploïde C. albicans-stam (SC5314) waargenomen in respons op C. glabrata-cellen in een membrane insert well plate-opstelling of C. glabrata CFS. De gegevens vertegenwoordigen de mediaan ± 95% betrouwbaarheidsintervallen, uit drie onafhankelijke biologische experimenten, met n = 50 cellen. ns, niet significant: p > 0,05. Klik hier om een grotere versie van deze figuur te bekijken.
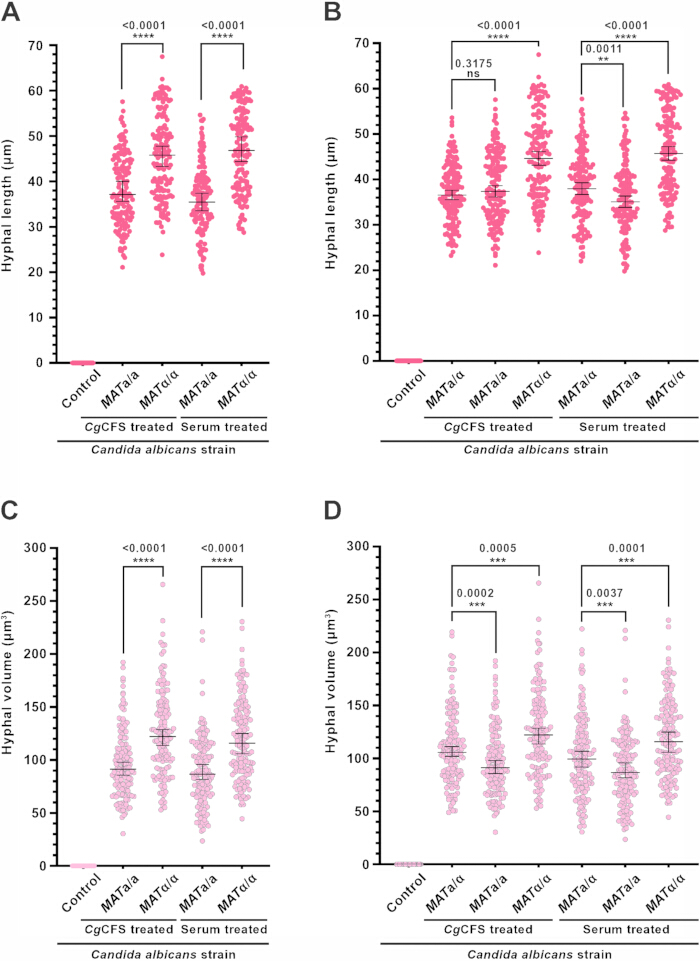
Figuur 3: Paringstype en zygositeit hebben significante effecten op de hyfemorfoloie in diploïde C. albicans. Grafieken die de vergelijkende hyfelengtes tonen, in reactie op het aangegeven inducerende molecuul, tussen homozygote diploïden (A) en tussen hetero- en homozygote diploïden (B) van C. albicans. Op soortgelijke wijze worden de vergelijkende hyfelvolumes, in reactie op de genoemde inducerende moleculen, getoond tussen homozygote diploïden (C) en tussen hetero- en homozygote diploïden (D). Controle: YPD, de controle met medium dat geen hyfevorming induceert. De gegevens representeren de mediaan ± 95% betrouwbaarheidsintervallen, uit drie onafhankelijke biologische experimenten, met n = 50 cellen. De aangegeven getallen bovenaan de grafiek zijn p-waarden, bepaald door Wilcoxon rank sum test vergelijkingen. **: p < 0.01, ***: p < 0.001, ****: p < 0.0001, statistisch significant; ns, niet significant: p > 0.05. Klik hier om een grotere versie van deze figuur te bekijken.
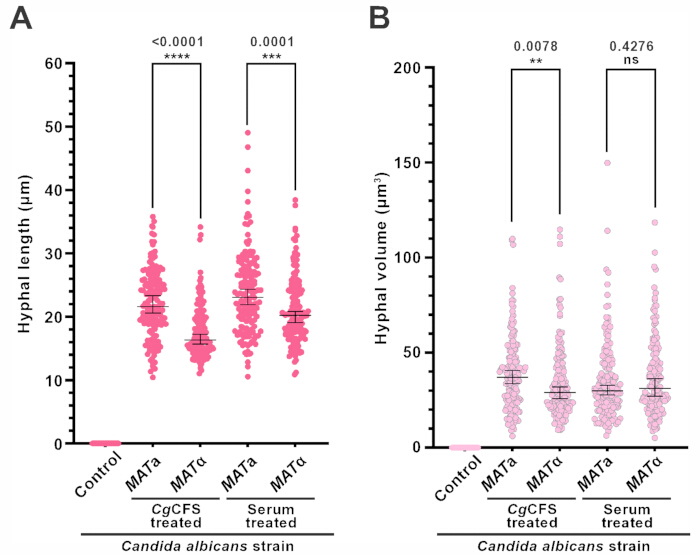
Figuur 4: Hyfale kenmerken in haploïde C. albicans als reactie op verschillende moleculaire induceerders. De grafieken tonen de hyfale lengtes (A) en hyfale volumes (B) in haploïde C. albicans-stammen, als reactie op de aangegeven induceerder. Controle: YPD, de controle met het niet-hyfaal-inducerende medium. De gegevens vertegenwoordigen de mediaan ± 95% betrouwbaarheidsintervallen, uit drie onafhankelijke biologische experimenten, met n = 50 cellen. Aangegeven getallen duiden de p-waarden aan, bepaald met de Wilcoxon-rangsomtoets. **: p < 0,01, ***: p < 0,001, ****: p < 0,0001, statistisch significant; ns, niet significant: p > 0,05. Klik hier om een grotere versie van deze figuur te bekijken.
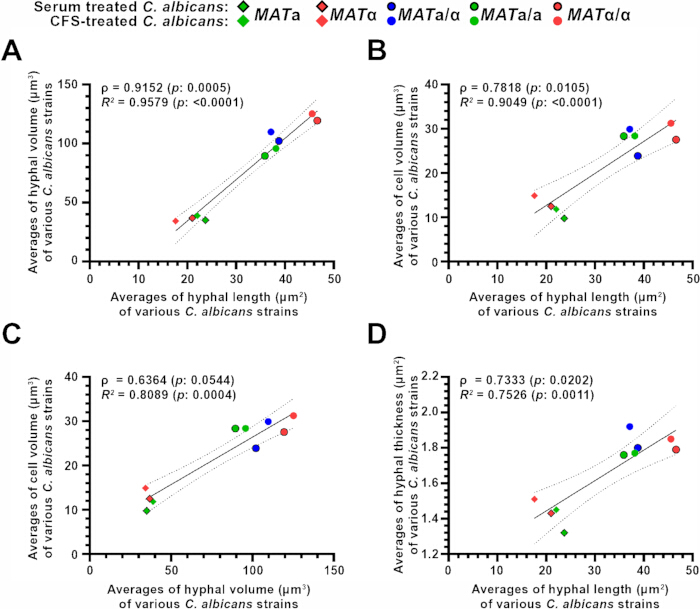
Figuur 5: Correlatie tussen morfologische parameters overeenkomstig met de ploidie van C. albicans. De plots tonen de Spearman-correlatie en lineaire regressie tussen de in deze studie gebruikte morfologische parameters, namelijk hyfenvolume en hyfenlengte (A), celvolume en hyfenlengte (B), celvolume en hyfenvolume (C), en hyfendikte en hyfenlengte (D). ρ: Spearman-correlatiecoëfficiënt; R2: determinatiecoëfficiënt uit lineaire regressieanalyse; p: p-waarde. Klik hier om een grotere versie van deze figuur te bekijken.
| Stam | Soort | Ploidie | Genotype | Bron |
| CBS138 | Candida glabrata | Haploïd (1n) | MATα | ATCC 2001 |
| SC5314 | Candida albicans | Diploïd (2n) | Heterozygoot (MATa/α) | ATCC MYA-2876 |
| RBY1132 | Candida albicans | Diploïd (2n) | Homozygoot (MATa/a); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | Schaefer, D., Côte, P., Whiteway, M., Bennett, R.J. Barrier Activity in Candida albicans Mediates Pheromone Degradation and Promotes Mating. Eukaryotic Cell. 6 (6), 907–918, doi: 10.1128/ec.00090-07 (2007). |
| RBY1133 | Candida albicans | Diploïd (2n) | Homozygoot (MATα/α); arg4Δ/arg4Δ, leu2Δ/leu2Δ, his1Δ/his1Δ, URA3/ura3Δ | |
| GZY896 | Candida albicans | Haploïd (1n) | Homozygoot (MATa); ura3∆::imm434 his4 gal1∆::ura3∆::HIS4 | Hickman, M.A. et al. The ‘obligate diploid’ Candida albicans forms mating-competent haploids. Nature. 494 (7435), 55–59, doi: 10.1038/nature11865 (2013). |
| GZY803 | Candida albicans | Haploïd (1n) | Homozygoot (MATα); his4 ura3Δ::HIS4 |
Tabel 1: Stammen van Candida albicans en Candida glabrata gebruikt in deze studie. De tabel beschrijft de aanduidingen, expliciete genotypen, ploidie-toestanden en paringstype-zygositeit voor de schimmelstammen die zijn geëvalueerd in de co-cultuur in contactloze membraan-insert wellplates en assays op basis van celvrij supernatant (CFS).
Aanvullende Tabel 1: Gegevens van statistische analyses uitgevoerd op diverse morfologische parameters van C. albicans. Klik hier om dit bestand te downloaden.
Aanvullende Tabel 2: Ruwe waarden van alle biologische herhalingen van diverse morfologische parameters van C. albicans die in deze studie zijn geëvalueerd.Klik hier om dit bestand te downloaden.
Aanvullend bestand 1: Lijst van in deze studie gebruikte media met hun samenstellingen.Klik hier om dit bestand te downloaden.
Discussie
Een eerder rapport, waarin een membrane insert well plate en een CFS-gebaseerde assay werden gebruikt, toonde aan dat C. albicans hyfen ontwikkelt als reactie op C. glabrata-cellen of hun CFS. Deze respons werd echter niet geïnduceerd door andere gisten, zoals Saccharomyces cerevisiae en Candida dubliniensis30. Bovendien was deze hyfale respons niet beperkt tot alleen de C. albicans SC5314 laboratoriumreferentiestam, maar kwam deze ook voor in andere genomische achtergronden, waaronder het klinische isolaat WUM5A30. In dit protocol is op basis van deze bevindingen een gestandaardiseerde workflow opgezet om drie morfologische meetwaarden te kwantificeren: hyfelengte, hyfevolume en hyfedikte. Verder werden deze morfologische factoren gebruikt om te beoordelen hoe variaties in ploidie en de status van de paringstype-locus de morfologische kenmerken van C. albicans beïnvloeden als reactie op een uitgescheiden induceermolecuul.
De hier beschreven contactloze methodologieën bieden een eenvoudig experimenteel kader voor het visualiseren en analyseren van de morfometrische resultaten van oplosbare cross-species signaleringsfactoren. Hoewel de wellplaat met membraaninsert bidirectionele diffusie tussen actieve culturen mogelijk maakt, biedt de CFS-gebaseerde assay een schaalbaar formaat omdat de vereiste inductiecomponenten onafhankelijk van de downstream doelcultuur worden geoogst. Voor de consistentie van de assay is het noodzakelijk om een verhouding van ongeveer 1:50 (C. albicans ten opzichte van C. glabrata) te handhaven in de opstelling met de membraaninsert wellplaat. Deze concentratiegradiënt garandeert een adequate flux van de oplosbare inductiemoleculen door de membraanbarrière, terwijl deze onder de accumulatiedrempels van endogene quorumsensing-remmers blijft, zoals farnesol, die de filamentatiekinetiek van C. albicans kan onderdrukken31,32. Evenzo is een kritische stap in de CFS-gebaseerde assay de incubatieperiode van 18 uur die nodig is om de C. glabrata broncultuur uniform in de late stationaire groeifase te laten komen. Als de incubatieperiode voor de C. glabrata cultuur minder dan 12 u of meer dan 24 u bedraagt, is de kans kleiner dat het geoogste CFS een optimale concentratie van het hier bestudeerde specifieke inducer-molecuul bevat, wat leidt tot een suboptimale hyfale inductie. De geschikte groeifase voor het oogsten van het CFS of de verhouding tussen de culturen moet worden gestandaardiseerd voor elk nieuw experimenteel doel en/of nieuwe combinaties van microbiële soorten.
Om de reproduceerbaarheid van de assay in verschillende laboratoriumomgevingen te maximaliseren, worden de volgende belangrijke procedurele verfijningen aanbevolen. Het gebruik van Glucose Minimaal Medium (GMM) voor de overnight-cultivatie van alle diploïde C. albicans-lijnen wordt aanbevolen. Het gebruik van GMM onderdrukt de achtergrondauto-filamentatie die vaak wordt waargenomen in voedingsrijk YPD-medium. Dergelijke auto-filamentatie is ook in andere studies waargenomen, hoewel het onderliggende mechanisme nog onduidelijk is33. Het volledig fysiek verwijderen van de polycarbonaatmembraan-insert voorafgaand aan de beeldacquisitie wordt eveneens aanbevolen om lichtverstrooiing en optische aberraties te elimineren die kunnen interfereren tijdens bright-field microscopie bij hoge vergroting.
Hoewel deze contactloze configuraties helpen bij het scheiden van de rollen van oplosbare signaalcomponenten, brengen ze specifieke experimentele uitdagingen met zich mee. Contactloze assays zijn bijvoorbeeld gevoelig voor kleine risico's zoals membraanruptuur door onjuiste hantering en bijgevolg microbiële kruisbesmetting. Daarom moet er nauwkeurig worden gewerkt bij het positioneren van de pipetpuntjes, waarbij erop gelet moet worden dat de puntjes tijdens het bemonsteren de kamerwanden van de inserts raken en niet het membraan. Bovendien kan er fysieke kruisbesmetting tussen de compartimenten optreden door onjuiste (te grote) porieafmetingen, wat eenvoudig kan worden opgelost door inserts met een passende membraanporiegrootte te gebruiken. Schimmelovergroei of uitgebreide biofilmafzetting kan het poreuze membraan bedekken. Dit wordt voorkomen door de initiële inoculaties te beperken tot een OD600 = 0,1 en niet langer dan 12 u te incuberen. Daarnaast verspreiden microben zich mogelijk niet homogeen binnen de wells van het device, waarbij ze vaak clusteren of hechten nabij het membraan, wat kan leiden tot onverwachte afwijkingen in de optische dichtheidsmetingen. Verder kunnen deze systemen, omdat ze de twee populaties fysiek scheiden, geen interacties repliceren of evalueren die afhankelijk zijn van direct fysiek cel-op-celcontact. Denk hierbij aan de rijping van biofilms met gemengde soorten, mechanische co-aggregatie of signalering aangestuurd door aan het oppervlak verankerde celwandadhesinen. Hoewel deze plaat-gebaseerde assays een effectief eindpunt-snapshot bieden van de vroege filamentatiekinetiek (bij 3 u), leggen ze de groeidynamiek op lange termijn of het ruimtelijke gedrag niet vast. Voor onderzoekers die continue real-time tracking over langere perioden vereisen, kunnen gespecialiseerde microfluïdische perfusiekanalen of geautomatiseerde live-cell imaging chambers een geschikter alternatief bieden.
Cellulaire geometrie is fundamenteel gekoppeld aan metabole efficiëntie, waarbij de verhouding tussen oppervlakte en volume (SA/V) fungeert als een belangrijke drijfveer voor de opname van voedingsstoffen en intracellulair transport. Bij dimorfe en filamenteuze schimmels fungeert de overgang naar een verlengde hyfale morfotype als een structurele aanpassing om een geoptimaliseerde SA/V-ratio te behouden. Dit maakt een verspreide opname van voedingsstoffen langs de verlengde filamentwand mogelijk, terwijl metabole processen gericht op de hyfenschuif worden ondersteund34,35,36,37. Onze studie laat echter zien dat morfometrische schaling niet uniform proportioneel is over verschillende ploidiestatussen en configuraties van de paringstype-locus.
De gegenereerde morfometrische datasets via dit tracking-protocol onthult duidelijke structurele schaalings-trends die correleren met de ploidie, waarbij haploïde lijnen consistent kleinere absolute waarden vertonen over alle geometrische metrieken dan de overeenkomstige diploïde stammen (Figuur 5). Binnen de diploïde achtergrond is de homozygote MATα/α configuratie vertoonde verbeterde filamentatiekinetiek (lengte en volume) ten opzichte van MATa/a of MATa/α stammen onder deze in vitro omstandigheden. Gezien het feit dat versterkte filamentatie vaak wordt geassocieerd met een verhoogde penetratiecapaciteit, is het onduidelijk waarom klinische isolaten van C. albicans worden hoofdzakelijk geïsoleerd als heterozygote diploïden (MATa/α). Het is mogelijk dat de heterozygote status binnen een immuuncompetente gastheer een breder fitnessvoordeel biedt voor commensale kolonisatie op de lange termijn. Met andere woorden, de structurele kenmerken van de MATa/α morfotypen zijn geoptimaliseerd voor overleving tegen de immuunbewaking van de gastheer. Toekomstige onderzoeken zouden daarom gebruik moeten maken van deze gestandaardiseerde co-cultuursystemen om de relatieve fitness van verschillende homozygote paringstypen systematisch te evalueren onder uiteenlopende selectieve druk.
Eerdere studies hebben aangetoond dat vacuolaire morfologie, fissie-fusiedynamiek en structurele expansie belangrijke rollen spelen bij het beheersen van het interne volume en de turgordruk van verlengende schimmelfilamenten. Zo zijn bij de rijstblastpathogeen Magnaporthe oryzae duidelijke overgangen tussen slanke vegetatieve hyfen en bolvormige invasieve structuren nauw gecoördineerd met veranderingen in de vacuolaire organisatie38,39,40. Het huidige protocol monitorde echter de vacuolaire dynamiek tijdens de filamentatie van C. albicans niet direct; het volgen van deze veranderingen in interne organellen in relatie tot het totale structurele volume vormt een informatieve richting voor toekomstig onderzoek. Daarnaast is verder onderzoek gerechtvaardigd om te bepalen waarom specifieke secretoomcomponenten van schimmelherkomst verschillende morfologische schalingskinetiek aansturen dan chemische inductoren van de gastheer, zoals serum.
De in dit protocol beschreven contactloze co-cultuurmethoden kunnen worden aangepast om interacties tussen verschillende soorten en koninkrijken te onderzoeken, zoals de signaleringsdynamiek tussen opportunistische bacteriële populaties en dimorfe schimmels. Bovendien kunnen deze 96-wells en 24-wells formaten worden opgeschaald, waardoor dit kwantitatieve platform kan worden ingezet voor chemische screening. Voorbeelden hiervan zijn de identificatie van kleine-molecuulremmers of nieuwe antifungale verbindingen om selectief secretoom-gestimuleerde filamentatiepaden te verstoren zonder de basiscellevensvatbaarheid direct te beïnvloeden.
Openbaarmakingen
De auteurs verklaren dat er geen concurrerende of tegenstrijdige belangen zijn.
Dankbetuigingen
Dit werk werd ondersteund door de DBT-Wellcome Trust India Alliance Intermediate Fellowship (IA/I/19/1/504294) toegekend aan RNP. KBSS werd ondersteund door de Ahmedabad University Special Research Grant (AU/SRG/SAS/20-21/07_KS_03.25) en de SERB-Core Research Grant (URBSASE23A6/SERB/23-24/KS_02.27). De iconen gebruikt in Figuur 1 zijn aangepast van Servier Medical Art (https://smart.servier.com/), gelicentieerd onder CC BY 4.0 (https://creativecommons.org/licenses/by/4.0/), en van BioArt Source, NIAID, NIH.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0,22 μm PES spuitfilter | Millipore (Merck) | SLGPR33RS | |
| Agar-agar | HiMedia | GRM666 | |
| Glucose | HiMedia | GRM016 | |
| Nunc 24-well Carrier Plate met cellkweekinserts (0,4 μm) | Thermo Scientific | 141002 | |
| Nunc BioLite 96 Well Multidish, behandeld voor cellkweek, vlakke bodem | Thermo Scientific | 130188 | |
| Proteose peptone | HiMedia | RM005 | |
| Uridine | Sigma | U6381 | |
| Gisteextract | HiMedia | RM027 | |
| Yeast Nitrogen Base, met ammoniumsulfaat, zonder aminozuren | HiMedia | M878 |
Referenties
- Peleg AY, Hogan DA, Mylonakis E. Medically important bacterial-fungal interactions. Nat Rev Microbiol. 2010;8(5):340-349.
- Waters CM, Bassler BL. Quorum sensing: cell-to-cell communication in bacteria. Annu Rev Cell Dev Biol. 2005;21:319-346.
- Foster KR, Bell T. Competition, not cooperation, dominates interactions among culturable microbial species. Curr Biol. 2012;22(19):1845-1850.
- Carolus H, Van Dyck K, Van Dijck P. Candida albicans and Staphylococcus species: a threatening twosome. Front Microbiol. 2019;10:2162.
- Pasman R, et al. Candida albicans and Staphylococcus aureus reciprocally promote their virulence factor secretion and pro-inflammatory effects. Front Cell Infect Microbiol. 2025;15:1629373.
- Grandclément C, Tannières M, Moréra S, Dessaux Y, Faure D. Quorum quenching: role in nature and applied developments. FEMS Microbiol Rev. 2016;40(1):86-116.
- Goers L, Freemont P, Polizzi KM. Co-culture systems and technologies: taking synthetic biology to the next level. J R Soc Interface. 2014;11(96):20140065.
- Burmeister A, Grünberger A. Microfluidic cultivation and analysis tools for interaction studies of microbial co-cultures. Curr Opin Biotechnol. 2020;62:106-115.
- Kapoore RV, Padmaperuma G, Maneein S, Vaidyanathan S. Co-culturing microbial consortia: approaches for applications in biomanufacturing and bioprocessing. Crit Rev Biotechnol. 2022;42(1):46-72.
- Kalluri R. The biology and function of fibroblasts in cancer. Nat Rev Cancer. 2016;16(9):582-598.
- Deveau A, et al. Bacterial-fungal interactions: ecology, mechanisms and challenges. FEMS Microbiol Rev. 2018;42(3):335-352.
- Temkin MI, Carlson CM, Stubbendieck AL, Currie CR, Stubbendieck RM. High throughput co-culture assays for the investigation of microbial interactions. J Vis Exp. 2019;(152). doi:10.3791/60275.
- Cecchelli R, et al. A stable and reproducible human blood-brain barrier model derived from hematopoietic stem cells. PLoS One. 2014;9(6):e99733.
- Wodzanowski KA, Cassel SE, Grimes CL, Kloxin AM. Tools for probing host-bacteria interactions in the gut microenvironment: from molecular to cellular levels. Bioorg Med Chem Lett. 2020;30(10):127116.
- Luo Y, McAuley DF, Fulton CR, Pessoa JS, McMullan R, Lundy FT. Targeting Candida albicans in dual-species biofilms with antifungal treatment reduces Staphylococcus aureus and MRSA in vitro. PLoS One. 2021;16(4):e0249547.
- Justus CR, Marie MA, Sanderlin EJ, Yang LV. Transwell in vitro cell migration and invasion assays. Methods Mol Biol. 2023;2644:349-359.
- McCarty NS, Ledesma-Amaro R. Synthetic biology tools to engineer microbial communities for biotechnology. Trends Biotechnol. 2019;37(2):181-197.
- Virgo M, Mostowy S, Ho BT. Emerging models to study competitive interactions within bacterial communities. Trends Microbiol. 2025;33(6):688-700.
- Moutinho TJ, Panagides JC, Biggs MB, Medlock GL, Kolling GL, Papin JA. Novel co-culture plate enables growth dynamic-based assessment of contact-independent microbial interactions. PLoS One. 2017;12(8):e0182163.
- Gnecchi M, Zhang Z, Ni A, Dzau VJ. Paracrine mechanisms in adult stem cell signaling and therapy. Circ Res. 2008;103(11):1204-1219.
- Hogan DA, Vik Å, Kolter R. A Pseudomonas aeruginosa quorum-sensing molecule influences Candida albicans morphology. Mol Microbiol. 2004;54(5):1212-1223.
- Poon Y, Hui M. Inhibitory effect of lactobacilli supernatants on biofilm and filamentation of Candida albicans, Candida tropicalis, and Candida parapsilosis. Front Microbiol. 2023;14. doi:10.3389/fmicb.2023.1105949.
- Huh D, Matthews BD, Mammoto A, Montoya-Zavala M, Hsin HY, Ingber DE. Reconstituting organ-level lung functions on a chip. Science. 2010;328(5986):1662-1668.
- Huh D, et al. Microfabrication of human organs-on-chips. Nat Protoc. 2013;8(11):2135-2157.
- Bhatia SN, Ingber DE. Microfluidic organs-on-chips. Nat Biotechnol. 2014;32(8):760-772.
- Itani A, Shida Y, Ogasawara W. A microfluidic device for simultaneous detection of enzyme secretion and elongation of a single hypha. Front Microbiol. 2023;14:1125760.
- Beneyton T, Thomas S, Griffiths AD, Nicaud JM, Drevelle A, Rossignol T. Droplet-based microfluidic high-throughput screening of heterologous enzymes secreted by the yeast Yarrowia lipolytica. Microb Cell Fact. 2017;16:18.
- Xu XL, et al. Bacterial peptidoglycan triggers Candida albicans hyphal growth by directly activating the adenylyl cyclase Cyr1p. Cell Host Microbe. 2008;4(1):28-39.
- Yeast extract-peptone-dextrose (YPD) medium (liquid or solid). Cold Spring Harb Protoc. 2017;2017(8):pdb.rec090563.
- Parnandi VA, Trivedi PM, Panchal H, Suryawanshi G, Patkar RN. A small Candida glabrata protein promotes hyphal growth in C. albicans during mixed-species invasive candidiasis. Curr Biol. 2026;36(1):1-15.e9.
- Davis-Hanna A, Piispanen AE, Stateva LI, Hogan DA. Farnesol and dodecanol effects on the Candida albicans Ras1-cAMP signalling pathway and the regulation of morphogenesis. Mol Microbiol. 2008;67(1):47-62.
- Polke M, et al. A functional link between hyphal maintenance and quorum sensing in Candida albicans. Mol Microbiol. 2017;103(4):595-617.
- Su C, Yu J, Sun Q, Liu Q, Lu Y. Hyphal induction under the condition without inoculation in Candida albicans is triggered by Brg1-mediated removal of NRG1 inhibition. Mol Microbiol. 2018;108(4):410-423.
- Senesi N, Wilkinson KJ. Biophysical Chemistry of Fractal Structures and Processes in Environmental Systems. Chichester: John Wiley & Sons; 2008: ISBN: 978-0-470-01474-5.
- Bayry J, Aimanianda V, Guijarro JI, Sunde M, Latgé JP. Hydrophobins—unique fungal proteins. PLoS Pathog. 2012;8(5):e1002700.
- Ojkic N, Serbanescu D, Banerjee S. Surface-to-volume scaling and aspect ratio preservation in rod-shaped bacteria. eLife. 2019;8:e47033.
- Li X, de Souza RA, Heinemann M. The rate of glucose metabolism sets the cell morphology across yeast strains and species. Curr Biol. 2025;35(4):788-798.e4.
- Mochizuki S, Minami E, Nishizawa Y. Live-cell imaging of rice cytological changes reveals the importance of host vacuole maintenance for biotrophic invasion by blast fungus, Magnaporthe oryzae. MicrobiologyOpen. 2015;4(6):952-966.
- Fernandez J, Orth K. Rise of a cereal killer: the biology of Magnaporthe oryzae biotrophic growth. Trends Microbiol. 2018;26(7):582-597.
- Wengler MR, Talbot NJ. Mechanisms of regulated cell death during plant infection by the rice blast fungus Magnaporthe oryzae. Cell Death Differ. 2025;32(5):793-801.
Herprints en machtigingen
