In deze studie werden netwerkfarmacologie en moleculaire dynamicasimulaties gebruikt om de moleculaire mechanismen en routes van plumbagine bij de behandeling van prostaatkanker te onderzoeken. De resultaten tonen aan dat plumbagine stabiel kan binden aan AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC en PPARG.
Onderzoeksartikel
Computationele analyse van plumbagine bij prostaatkanker met behulp van netwerkfarmacologie en moleculaire dynamicasimulaties
29 weergaven
⸱
11 september 2026
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Prostaatkanker is een belangrijke factor in de kankergerelateerde mortaliteit onder mannen. Omdat veel patiënten pas worden gediagnosticeerd nadat de ziekte is gevorderd naar een lokaal gevorderd of metastatisch stadium, is een curatieve behandeling vaak niet meer mogelijk. In de huidige studie hebben we een geïntegreerde computationele benadering toegepast, bestaande uit netwerkfarmacologie, moleculaire docking en moleculaire dynamicasimulaties, om de potentiële moleculaire mechanismen te onderzoeken die ten grondslag liggen aan de therapeutische effecten van plumbagine bij prostaatkanker. Potentiële therapeutische targets werden geïdentificeerd via een geïntegreerde databaseanalyse, gevolgd door de constructie van een proteïne-proteïne-interactienetwerk, functionele verrijkingsanalyse, moleculaire docking en moleculaire dynamicasimulaties om de stabiliteit van proteïne-ligandinteracties te evalueren. Onze computationele analyses wezen uit dat plumbagine stabiele interacties kan vormen met meerdere hub-targets, waaronder AKT serine/threonine kinase 1 (AKT1), oestrogeenreceptor 1 (ESR1), BCL2 apoptoseregulator (BCL2), epidermale groeifactorreceptor (EGFR), tumornecrosefactor (TNF), mitogeengestuurde proteïnekinase 3 (MAPK3), heat shock proteïne 90 alfa familie klasse A lid 1 (HSP90AA1), SRC proto-oncogeen, niet-receptor tyrosinekinase (SRC) en peroxisoom-proliferatie-activerende receptor gamma (PPARG), wat suggereert dat het in staat is om sleutelpaden te moduleren die betrokken zijn bij de progressie van prostaatkanker. Deze in silico bevindingen bieden nieuwe inzichten in de mogelijke moleculaire mechanismen van plumbagine en vormen een rationele basis voor toekomstige experimentele validatie. Desondanks zijn verdere in vitro en in vivo studies gerechtvaardigd om de functionele activiteit en therapeutische effectiviteit te bevestigen.
Inleiding
Prostaatkanker is heterogeen, met klinische manifestaties variërend van asymptomatische, via screening gedetecteerde laesies die mogelijk nooit progressie vertonen tot agressieve maligniteiten, en het is een leidende oorzaak van morbiditeit en mortaliteit wereldwijd1,2. Wereldwijd wordt voorspeld dat het aantal nieuwe gevallen van prostaatkanker zal verdubbelen van 1,4 miljoen in 2020 naar 2,9 miljoen in 2040, terwijl het jaarlijkse aantal sterfgevallen naar verwachting zal stijgen van 375.000 in 2020 naar ongeveer 700.000 in 20403. Prostaatkanker wordt aanvankelijk gediagnosticeerd als een androgeenafhankelijke maligniteit en is behandelbaar met androgeendeprivatietherapie. Desondanks gaat de ziekte, ondanks een effectieve initiële respons, onvermijdelijk over in een androgeenonafhankelijke vorm. Patiënten met hormoonrefractaire prostaatkanker hebben een significant verhoogd risico op het ontwikkelen van botmetastasen, wat leidt tot klinisch significante skeletlaesies4,5,6,7. Bovendien kan prostaatkanker in een vroeg stadium worden genezen met chirurgie of radiotherapie, maar veel patiënten presenteren zich bij diagnose al met lokaal gevorderde of gemetastaseerde ziekte, waarvoor momenteel geen curatieve behandeling bestaat8,9. Daarom is er een dringende behoefte aan de ontwikkeling van effectieve en zeer selectieve middelen voor de preventie en/of behandeling van prostaatkanker-metastasen.
Diverse natuurlijke extracten, zoals lycopeen, sojaproducten, groene thee, granaatappel-fenolen, apigenine, evenals vitaminen D en E, blijken effectief te zijn in het voorkomen van de ontwikkeling van prostaatkanker10,11,12,13. Plumbagine (PLB), een natuurlijk voorkomende naftochinonverbinding die veel in de natuur wordt aangetroffen en een hoofdbestanddeel is van Plumbago zeylanica, bezit anti-infectieve14, ontstekingsremmende15, anti-atherosclerotische16 en antitumorale17,18 eigenschappen. Studies hebben aangetoond dat PLB antitumorale effecten uitoefent in diverse kankerceltypen, waaronder borstkanker, niet-kleincellige longkanker, leverkanker, pancreaskanker, colorectale kanker, eierstokkanker, prostaatkanker, glioom en retinoblastoom19,20,21. In vitroexperimenten hebben aangetoond dat PLB de proliferatie van prostaatkankercellen remt22,23. PLB reguleert daarnaast de expressie van microproteïnen, wat op zijn beurt meerdere cellulaire processen in prostaatkankercellen beïnvloedt, waaronder celcycluscontrole, apoptose, autofagie en epitheliale-naar-mesenchymale transitie24,25. Bovendien vertraagt PLB de groei van androgeen-onafhankelijke kankercellen in subcutane xenograft-muismodellen22,26.
Hoewel talrijke studies hebben aangetoond dat PLB de proliferatie en invasie van prostaatkankercellen remt, is er momenteel geen systematisch onderzoek naar de targets en pathways waarlangs PLB op deze cellen inwerkt. Met behulp van netwerkfarmacologie, moleculaire docking en moleculaire dynamicasimulaties probeerde deze studie de potentiële targets en pathways te verduidelijken die ten grond liggen aan de therapeutische effecten van PLB bij prostaatkanker.
Protocol
Voorspelling en screening van potentiële doelen van PLB
De informatie over de chemische structuur van PLB werd verkregen uit de PubChem-database (https://pubchem.ncbi.nlm.nih.gov/). Moleculaire targets van PLB werden voorspeld op basis van ligand-gebaseerde tweedimensionale en driedimensionale gelijkenis met behulp van de databanken SwissTarget (https://swisstargetprediction.ch/index.php), SEA (https://sea.bkslab.org/), TargetNet (http://targetnet.scbdd.com/calcnet/index/), PharmMapper (https://www.lilab-ecust.cn/pharmmapper/index.html), Comparative Toxicogenomics Database (CTD, https://ctdbase.org/), Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform (TCMSP, https://www.tcmsp-e.com/index.php) en HERB (http://herb.ac.cn/). Om de betrouwbaarheid en reproduceerbaarheid van de gegevens te waarborgen, werden database-specifieke filterdrempels als volgt toegepast: TCMSP behield targets met een orale biobeschikbaarheid (OB) ≥ 30% en drug-likeness (DL) ≥ 0,18; SwissTargetPrediction behield vermeldingen met een voorspellingswaarschijnlijkheid ≥ 0,5; PharmMapper selecteerde targets met een genormaliseerde fit-score ≥ 4,0; SEA includerde alleen targets met een E-waarde < 0,001 als significant verrijkt; TargetNet behield targets met een voorspellingswaarschijnlijkheid > 0,5; CTD includerde alleen targets met gecureerde bewijslast (afgeleid van chemische-geninteracties) en een interactiescore > 0,3; en HERB behield targets met een op literatuur gebaseerde score ≥ 0,4. Alle opgehaalde eiwitidentificatoren uit de bovengenoemde databanken werden gestandaardiseerd naar officiële humane HGNC-gensymbolen met behulp van de UniProt-database (https://www.uniprot.org/), waarbij de soort beperkt bleef tot Homo sapiens. Na het verwijderen van dubbele vermeldingen uit alle bronnen werden in totaal 500 unieke PLB-gerelateerde targets verkregen voor verdere analyse.
Ophalen van prostaatkanker-geassocieerde genen
Ziektegerelateerde genen voor prostaatkanker werden verkregen uit GeneCards (https://www.GeneCardss.org/), DrugBank (https://go.drugbank.com/), CTD en HERB. Er werden databasespecifieke inclusiecriteria toegepast om de betrouwbaarheid van de gegevens te waarborgen. GeneCardss behield genen met een relevantiescore ≥ 0,5, aangezien deze drempelwaarde genen omvat met matig tot sterk bewijs dat hen verbindt met de ziektevraag. DrugBank bevatte alleen vermeldingen met experimenteel bewijs (bijv. FDA-goedgekeurde of onderzoekende geneesmiddelen voor prostaatkanker) en sloot computationeel voorspelde of theoretische interacties uit. CTD behield alleen records met bewijsniveaus geclassificeerd als "marker" of "mechanisme" op basis van gecureerde chemische-gen-ziekte-interacties. HERB bevatte targets met een in de literatuur ondersteunde betrouwbaarheidsscore ≥ 0,4 om voldoende experimenteel bewijs of bewijs uit tekstmining te garanderen. Alle gensymbolen werden via de UniProt-database (https://www.uniprot.org/) gestandaardiseerd naar de HGNC- nomenclatuur, waarbij de soorten beperkt bleven tot Homo sapiens, en duplicaten werden verwijderd, wat resulteerde in 1.199 unieke targets gerelateerd aan prostaatkanker voor verdere analyse.
Identificatie van overlappende doelwitten en correctie van conflictannotaties
De 500 PLB-targets en 1.199 prostaatkanker-targets werden geïntersecteerd met behulp van gestandaardiseerde HGNC-symbolen in Venny 2.1 (https://bioinfogp.cnb.csic.es/tools/venny/index.html), wat resulteerde in 151 overlappende kandidaat-targets. Om annotatieconflicten tussen databases op te lossen, werd een correctiepijplijn in drie stappen geïmplementeerd: (i) inconsistenties in gen-aliassen werden geünificeerd via de UniProt ID mapping tool; (ii) redundante paraloge genen werden uitgesloten met CD-HIT met een drempelwaarde voor sequentie-overeenkomst > 0.4; en (iii) tegenstrijdige functionele annotaties werden alleen behouden als ze werden ondersteund door ten minste twee onafhankelijke databases, terwijl unieke conflicterende beschrijvingen uit een enkele bron werden verworpen.
Netwerkconstructie en identificatie van hubs
Een eiwit-eiwitinteractienetwerk (PPI-netwerk) werd geconstrueerd door de overlappende targets in te voeren in de STRING-database (versie 12.0, https://cn.string-db.org/), waarbij de zoekopdracht werd beperkt tot Homo sapiens. Alleen interacties met een gecombineerde betrouwbaarheidsscore ≥ 0,700 werden behouden om een hoge betrouwbaarheid te waarborgen, en alle knopen zonder verbindingen werden uit het netwerk uitgesloten. Het geconstrueerde PPI-netwerk werd gevisualiseerd en topologisch geanalyseerd in Cytoscape (versie 3.10.2), waarna hub-genen werden bepaald met de cytoHubba-plugin, waarbij MCC (Maximal Clique Centrality) als primair rangschikkingsalgoritme en Degree als aanvullende crossvalidatiemetriek werden gebruikt.
Functionele verrijkingsanalyse
Functionele annotatie van de Gene Ontology (GO) en verrijkingsanalyses van Kyoto Encyclopedia of Genes and Genomes (KEGG)-paden voor de differentieel tot expressie gebrachte genen werden uitgevoerd met het Bioinformatics Online Analysis Platform (https://www.bioinformatics.com.cn, laatst geraadpleegd op 4 mei 2026). Het platform maakt gebruik van de exacte toets van Fisher om ruwe P-waarden te berekenen, en de Benjamini-Hochberg (BH)-methode werd gebruikt voor correctie op meervoudig testen om de false discovery rate (FDR) te beheersen. GO-termen (biologisch proces, cellulaire component en moleculaire functie) en KEGG-paden met een FDR < 0,05 werden beschouwd als significant verrijkt.
Moleculaire docking
Kristalstructuren van de geselecteerde doeleiwitten, die actieve conformaties vertegenwoordigen, werden verkregen uit de RCSB Protein Data Bank (https://www.rcsb.org/). De voorbereiding van de eiwitten werd uitgevoerd in Discovery Studio, inclusief het verwijderen van watermoleculen en heteroatomen, het verwijderen van redundante ketens, het herstellen van ontbrekende residuen, het toevoegen van waterstofatomen bij pH 7.4, het toewijzen van Gasteiger-ladingen en energieminimalisatie. De bindingspocket werd gedefinieerd op basis van de co-gekristalliseerde ligandcoördinaten, met gebruik van een grid dat alle kritische substraatbindende residuen omvatte. Moleculaire docking van PLB werd uitgevoerd met de SwissDock webserver (http://www.swissdock.ch/) via de Attracting Cavities-module. De vrije bindingsenergieën werden berekend om de affiniteit te beoordelen, en de conformatie met de laagste energie voor elk doeleiwit werd geselecteerd als de definitieve dockingpose. De resultaten van de moleculaire dockingsimulaties werden gevisualiseerd om deze te valideren.
Moleculaire dynamicasimulatie
Moleculaire dynamica (MD)-simulaties werden uitgevoerd met GROMACS 2022.2. Het Amber14SB-krachtveld werd gebruikt om het eiwit te beschrijven, waarbij het systeem werd gesolvateerd in TIP3P-water. Plumbagin-parameters, inclusief AM1-BCC partiële ladingen en GAFF2-atoomtypen, werden gegenereerd met Antechamber, gevolgd door topologieconversie met ACPYPE en toewijzing van Joung-Cheatham ionparameters. Elk eiwit-ligandcomplex werd ingebed in een afgeplatte dodecahedrische simulatiebox met een minimale afstand van eiwit tot box van 1,2 nm, gesolvateerd met TIP3P-watermoleculen en geneutraliseerd door toevoeging van 0,15 M Na⁺/Cl⁻. Na energieminimalisatie met het steepest descent-algoritme (Fmax < 1.000 kJ·mol⁻1·nm⁻1) onderging het systeem sequentiële NVT- en NPT-equilibratie van elk 200 ps bij 298 K. Productiesimulaties werden vervolgens uitgevoerd gedurende 200 ns onder NPT-condities met een integratietijdstap van 2 fs met behulp van het Verlet-cutoff-schema. Langeafstandselektrostatische interacties werden berekend met de particle mesh Ewald (PME)-methode, terwijl voor zowel elektrostatische als van der Waals-interacties een cutoff-afstand van 1,2 nm werd gehanteerd. Het LINCS-algoritme werd gebruikt om waterstofbevattende bindingen te beperken. De temperatuur werd op 298 K gehouden met de Nosé-Hoover-thermostaat en de druk op 1 bar met de Parrinello-Rahman-barostaat. Coördinaten werden elke 10 ps opgeslagen voor latere analyses. Trajectanalyse en visualisatie werden uitgevoerd met GROMACS-hulpprogramma's, VMD en PyMOL, terwijl MM-PBSA bindingvrije energieberekeningen, waar van toepassing, werden uitgevoerd met gmx_MMPBSA.
Equilibratiebeoordeling van moleculaire dynamiektrajecten en MM-PBSA vrije-energiebemonsteringsprotocol
Voor elk eiwit–plumbagine-complex werd een all-atom productie-moleculaire dynamics-simulatie van 200 ns uitgevoerd met GROMACS. Het tijdspunt van 100 ns werd ingesteld als de equilibratiegrens: het segment van 0–100 ns werd aangemerkt als de conformationele relaxatiefase, gedurende welke de eiwitbackbone en de ligandbindende pocket continue conformationele aanpassingen ondergingen; het segment van 100–200 ns werd geïdentificeerd als het thermodynamisch stabiele plateau, evidenced door de afwezigheid van unidirectionele drift in RMSD, gyratie-straal (Rg), residu-specifieke RMSF, begraven SASA van de ligand, intermoleculaire waterstofbruggen en ligand–receptor interactie-energieën, welke enkel geringe steady-state fluctuaties vertoonden. Alle kwantitatieve kinetische parameters en MM/PBSA-bindingsvrije energieën werden exclusief berekend uit de equilibriumfase van 100–200 ns, waaruit frames uniform elke 100 ps werden geëxtraheerd, wat resulteerde in 1.000 equilibrium-snapshots per systeem voor gmx_MMPBSA-input. De eerste 100 ns aan relaxatietrajecten werden verworpen om interferentie door conformationele drift in de vrije-energieberekeningen te elimineren.
Prognostische analyse van targetgenen bij prostaatkanker
Prognostische analyses werden uitgevoerd met prostaatkankerdatasets van The Cancer Genome Atlas (TCGA). RNA-sequencing-gegevens (STAR-counts) en de bijbehorende klinische informatie werden verkregen via het Genomic Data Commons-portaal (https://portal.gdc.cancer.gov). Genexpressietellingen werden omgezet naar transcripts per million (TPM) en genormaliseerd met behulp van log2(TPM + 1). Na uitsluiting van monsters met onvolledige klinische informatie werden 498 gevallen in de analyse opgenomen. Het mediane expressieniveau van elk gen werd gebruikt om patiënten te verdelen in groepen met een hoge en lage expressie. Kaplan-Meier-overlevingsanalyse met de log-ranktest en univariate Cox-proportional hazards-regressie werden uitgevoerd om de algehele overleving (OS) voor SRC en de progressievrije overleving (PFS) voor MAPK3 te evalueren, waarbij hazard ratio's (HR's) en 95% betrouwbaarheidsintervallen (CI's) werden gerapporteerd. De voorspellende prestaties werden verder beoordeeld door tijdafhankelijke receiver operating characteristic (ROC)-curves te genereren voor 1, 3 en 5 jaar. Statistische analyses werden uitgevoerd in R versie 4.0.3, waarbij P < 0,05 als statistisch significant werd beschouwd.
Resultaten
Voorspellingsresultaten van PLB en prostaatkankertargets
De PubChem CID van PLB is 10205, met de IUPAC-naam: 5-hydroxy-2-methylnaftaleen-1,4-dion, SMILES: CC1=CC(=O)C2=C(C1=O)C=CC=C2O, InChIKey: VCMMXZQDRFWYSE-UHFFFAOYSA-N, InChI: InChI=1S/C11H8O3/c1-6-5-9(13)10-7(11(6)14)3-2-4-8(10)12/h2-5,12H,1H3, molecuulgewicht: 188.18, molecuulformule: C11H8O3, CAS-nummer: 481-42-5. Na het verwijderen van duplicaten voorspelde deze studie 500 potentiële PLB-doelen met behulp van de SwissTarget-, SEA-, TargetNet-, PharmMapper-, CTD-, TCMSP- en HERB-databases (Supplementary Table S1). Na het verwijderen van duplicaten werden 1.199 potentiële doelen voor prostaatkanker voorspeld met behulp van de GeneCards-, DrugBank-, TCMSP-, CTD- en HERB-databases (Supplementary Table S2).
Werkingsmechanisme van PLB bij prostaatkanker voorspeld door netwerkfarmacologie
Er werd een Venndiagram opgesteld om de overlap van doelen te analyseren, waarbij 151 overlappende doelen naar voren kwamen (Figuur 1). Vervolgens werd een eiwit-eiwitinteractienetwerk (PPI) opgebouwd voor deze overlappende genen (Figuur 2) en gevisualiseerd op basis van de knooppuntgraad, waarbij donkerder rood en grotere knooppunten een hogere graad aangeven (Figuur 3). Met behulp van Cytoscape-software werden de kern-doelgenen (top 20) onder de overlappende genen geanalyseerd, waarbij TP53 de hoogste graad had van 112, gevolgd door AKT1 met een graad van 111 (Figuur 4).
Vervolgens werden de overlappende genen geüpload naar de DAVID-database voor genontologie (GO) en KEGG-weganalyse-verrijking. De GO-analyse leverde 4.156 biologische processen op (Supplementaire Tabel S3), 292 cellulaire componenten (Supplementaire Tabel S4) en 562 moleculaire functies (Supplementaire Tabel S5). De 10 meest significant verrijkte termen in elke categorie werden gevisualiseerd (Figuur 5A-C). Volgens de KEGG-analyse waren 187 signaleringswegen significant verrijkt (Supplementaire Tabel S6), waarvan de 10 meest relevante worden getoond in Figuur 5D. Deze omvatten signaleringswegen die geassocieerd worden met prostaatkanker, hepatitis B, proteoglycanen bij kanker, resistentie tegen EGFR-tyrosinekinaseremmers, lipidemetabolisme en atherosclerose, humane cytomegalovirusinfectie, colorectale kanker, endocriene resistentie, het AGE-RAGE-pad bij diabetescomplicaties en het PI3K-Akt-signaleringspad.
Kern doelwitten van PLB bij de behandeling van prostaatkanker
Analyse met behulp van netwerkfarmacologie identificeerde 151 overlappende genen tussen PLB en prostaatkanker. Op basis van het PPI-netwerk selecteerden we de 20 meest waarschijnlijke kern-doelwitgenen met de hoogste connectiviteit: tumoreiwit p53 (TP53), AKT serine/threoninekinase 1 (AKT1), signaaltransductor en activator van transcriptie 3 (STAT3), oestrogeenreceptor 1 (ESR1), BCL2 apoptose-regulator (BCL2), interleukine 6 (IL6), epidermale groeifactorreceptor (EGFR), catenine bèta 1 (CTNNB1), tumor necrose factor (TNF), fosfatase en tensine homoloog (PTEN), caspase 3 (CASP3), mitogeen-geactiveerde proteïnekinase 3 (MAPK3), hittestressproteïne 90 alpha familie klasse A lid 1 (HSP90AA1), SRC proto-oncogen, niet-receptortyrosinekinase (SRC), peroxisoomvermenigvuldigingsactiverend receptor gamma (PPARG), mechanistisch doelwit van rapamycinekinase (MTOR, heatshockproteïne 90 alpha familie klasse B lid 1 (HSP90AB1), glycogeensynthasekinase 3 beta (GSK3B), prostaglandine-endoperoxide synthase 2 (PTGS2) en matrixmetalloproteïnase 9 (MMP9). TP53 de hoogste connectiviteit vertoonde, gevolgd door AKT1, wat suggereert dat deze mogelijke sleuteldoelen zijn.
Om de definitieve doelen voor docking- en moleculaire dynamica-simulaties te selecteren, gaven we prioriteit aan genen die coderen voor pro-oncogene eiwitten met beschikbare kristalstructuren en gedefinieerde bindingszakken, inclusief AKT1, STAT3, ESR1, BCL2, IL6, EGFR, TNF, MAPK3, HSP90AA1, SRC, PPARG, MTOR, HSP90AB1, GSK3B, PTGS2 en MMP9. Omgekeerd, tumorsuppressorgenen, waaronder TP53, werden uitgesloten omdat ze niet overeenkomen met de therapeutische strategie van doelwitinhibitie.
Daarom werden verdere moleculaire dockingstudies uitgevoerd. De resultaten toonden aan dat PLB met AKT1 interageert via TRP80, SER205, LEU210, LEU264 en LYS268, met een bindingsenergie (BE) van -7,764 kcal/mol27; PLB interageert met STAT3 via GLU612, SER613, ARG609 en PRO639, met een BE van -5,149 kcal/mol28; PLB interageert met ESR1 via LEU346, PHE404, ALA350, LEU387 en LEU391, met een BE van -7,165 kcal/mol29; PLB interageert met BCL2 via LYS53, PHE54 en HIS50, met een BE van -5,564 kcal/mol30; PLB interageert met IL6 via GLN28, LYS27 en ARG24, met een BE van -4,462 kcal/mol31; PLB interageert met EGFR via LEU778, LEU707 en LEU789, met een BE van -6,255 kcal/mol32; PLB interageert met TNF via TYR59, GLY121 en LEU120, met een BE van -6,570 kcal/mol33; PLB interageert met MAPK3 via ALA69, VAL56, ILE48, LEU124, MET125 en LEU173, met een BE van -7,369 kcal/mol34; PLB interageert met HSP90AA1 via LEU107, PHE138, TYR139 en TRP162, met een BE van -8,947 kcal/mol35; PLB interageert met SRC via LEU276, TYR343, MET344, ALA296, LEU396 en VAL284, met een BE van -7,469 kcal/mol36; PLB interageert met PPARG via LEU330, ARG288, ILE326, MET329 en ALA292, met een BE van -6,538 kcal/mol37; PLB interageert met MTOR via ALA2073, SER2069 en HIS2024, met een BE van -4,672 kcal/mol38; PLB interageert met HSP90AB1 via TYR134, PHE133, TRP157 en LEU102, met een BE van -6,928 kcal/mol39; PLB interageert met GSK3B via VAL70, VAL135 en ALA83, met een BE van -6,799 kcal/mol40; PLB interageert met PTGS2 via VAL315, THR561, ARG311 en ILE558, met een BE van -5,081 kcal/mol41; PLB interageert met MMP9 via LEU187, ALA189, MET247, TYR248, LEU188, HIS226 en VAL223, met een BE van -7,101 kcal/mol42. Met uitzondering van IL6 en MTOR lagen de bindingsenergieën van PLB met de overige eiwitten onder -5 kcal/mol, wat aangeeft dat PLB mogelijk stabiel aan deze eiwitten bindt (Tabel 1).
Vervolgens werden moleculaire dynamische simulaties uitgevoerd om de interacties van PLB met deze doelproteïnen verder te analyseren en de bindingsstabiliteit te verifiëren. Hoewel sommige verbindingen hoog scoorden in docking-scores, toonden voorlopige moleculaire dynamische simulaties een vroege liganddrift of ernstige conformationele vervormingen in verschillende systemen aan. Daarom werden deze instabiele complexen uitgesloten en alleen de complexen behouden die na initiële relaxatie een consistente bindingsoriëntatie behielden, waarop zij werden voortgezet als kandidaten voor uitgebreide moleculaire dynamische simulaties. De uiteindelijk behouden doelproteïnen waren AKT1 (Supplementary File 1—Supplementary Figure S1), ESR1 (Supplementary File 1—Supplementary Figure S2), BCL2 (Supplementary File 1—Supplementary Figure S3), EGFR (Supplementary File 1—Supplementary Figure S4), TNF (Supplementary File 1—Supplementary Figure S5), MAPK3 (Supplementary File 1—Supplementary Figure S6), HSP90AA1 (Supplementary File 1—Supplementary Figure S7), SRC (Supplementary File 1—Supplementary Figure S8) en PPARG (Supplementary File 1—Supplementary Figure S9). Na 200 ns simulatie stabiliseerde de RMSD van de complexstructuren van PLB met AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC en PPARG geleidelijk gedurende de simulatie (zie Supplementary File 1—Supplementary Figure S1-S9, paneel A). Tegelijkertijd stabiliseerden metrieken zoals Rg (zie Supplementary File 1—Supplementary Figure S1-S9, paneel B), root mean square fluctuation (RMSF) (zie Supplementary File 1—Supplementary Figure S1-S9, paneel C), de afstand tussen het eiwit en de ligandbindingsplaats (Dock site-ligand) (zie Supplementary File 1—Supplementary Figure S1-S9, paneel D), begraven solvent toegankelijke oppervlakte (Buried SASA) (zie Supplementary File 1—Supplementary Figure S1-S9, paneel E) en superpositie van bindingsconformatie (zie Supplementary File 1—Supplementary Figure S1-S9, paneel F) zich geleidelijk naarmate de simulatie vorderde. Deze resultaten geven aan dat de eiwit-ligandcomplexen structurele stabiliteit behielden gedurende de gehele simulatie. RMSD, Rg, RMSF, eiwit-ligandafstand en begraven SASA bereikten geleidelijk stabiele waarden, wat wijst op een compact complex met beperkte atomaire fluctuaties en aanhoudende ligandbezetting binnen de bindingspocket. Daarnaast bleef het contactoppervlak tussen plumbagin en het eiwit gedurende de tijd relatief constant. Van der Waals-, hydrofobe en electrostatische interacties vertoonden eveneens stabiele profielen gedurende de simulaties, wat de algehele stabiliteit van de eiwit-plumbagincomplexen verder ondersteunt (zie Supplementary File 1—Supplementary Figure S1-S9, paneel G).
Gezien de solvatatie-energie en een uitgebreide evaluatie van RMSD, Rg, afstand, begraven SASA en interactie-energieën, werden trajecten van stabiele complexen geselecteerd om BE-gerelateerde termen te berekenen met behulp van de MM-PBSA-methode (Moleculaire Mechanica-Poisson Boltzmann Oppervlaktegebied). Om betrouwbaarheidsmaatregelen te bieden voor de gerapporteerde affiniteitsrangschikkingen, worden alle bindingsvrije energieën gerapporteerd als gemiddelde ± SEM, berekend uit snapshots die zijn verkregen uit de geëquilibreerde MD-trajecten (Tabel 2). Van deze eiwitten vertoonde AKT1 de meest negatieve bindingsvrije energie, gevolgd door ESR1, HSP90AA1, SRC en PPARG, wat suggereert dat PLB stabiel aan deze doeleiwitten kan binden.
Bovendien heeft dit onderzoek de wisselwerkende residuen tussen PLB en de doelen geanalyseerd (zie Tabel 3) en geconstateerd dat PLB stabiel aan de doeleiwitten bindt, voornamelijk via waterstofbruggen (zie Supplementary File 1—Supplementary Figure S1-S9, paneel I), hydrofobe interacties en van der Waals-krachten. Door de bijdrage van aminozuurbindingsenergieën te analyseren (zie Supplementary File 1—Supplementary Figure S1-S9, paneel H) en de eiwit-PLB-interacties, heeft dit onderzoek aangetoond: voor AKT1 zijn de belangrijkste aminozuren voor PLB-binding TRP80 en LEU264, waarbij van der Waals-krachten de hoofdrol spelen en elektrostatische en hydrofobe interacties een ondergeschikte rol vervullen; voor ESR1 zijn de belangrijkste aminozuren LEU346 en LEU525, waarbij van der Waals-krachten de hoofdrol spelen, hydrofobe interacties een secundaire rol en elektrostatische interacties een aanvullende rol; voor BCL2 zijn de belangrijkste aminozuren TYR108 en PHE104, waarbij van der Waals-krachten de hoofdrol spelen en elektrostatische en hydrofobe interacties een ondergeschikte rol vervullen; voor EGFR zijn de belangrijkste aminozuren MET1002 en TYR998, waarbij van der Waals-krachten de hoofdrol spelen en elektrostatische en hydrofobe interacties een ondergeschikte rol vervullen; voor TNF-α zijn de belangrijkste aminozuren TYR59 en HIE15, waarbij van der Waals-krachten de hoofdrol spelen en elektrostatische en hydrofobe interacties een ondergeschikte rol vervullen; voor MAPK3 zijn de belangrijkste aminozuren TYR53 en LEU173, waarbij van der Waals-krachten de hoofdrol spelen en elektrostatische en hydrofobe interacties een ondergeschikte rol vervullen; voor HSP90AA1 zijn de belangrijkste aminozuren PHE138 en LEU107, waarbij van der Waals-krachten de hoofdrol spelen en elektrostatische en hydrofobe interacties een ondergeschikte rol vervullen; voor SRC zijn de belangrijkste aminozuren LEU276 en LEU396, waarbij van der Waals-krachten de hoofdrol spelen en elektrostatische en hydrofobe interacties een ondergeschikte rol vervullen; voor PPARG zijn de belangrijkste aminozuren LEU330 en ILE326, waarbij van der Waals-krachten de hoofdrol spelen en elektrostatische en hydrofobe interacties een ondergeschikte rol vervullen.
Alle eiwitkristalstructuren die in dit onderzoek zijn gebruikt, met uitzondering van BCL2, werden gecocrystalliseerd met bekende remmers. Om de betrouwbaarheid van onze dockingaanpak en het bindingspotentieel van PLB verder te valideren, definieerden we de actieve bindingszakken op basis van de oorspronkelijke bindingsplaatsen van de remmers. Zowel PLB als de respectieve natuurlijke remmers werden gedocked in dezelfde zakken, en hun bindingsvrije energieën werden berekend en vergeleken. Voor elk doelwit werden alleen die dockingposities van de natuurlijke remmer meegenomen voor energievergelijking die de kristallografische bindingsconformatie nauwkeurig reproduceerden. Zoals weergegeven in Tabel 4, waren de bindingsvrije energieën van PLB vergelijkbaar met die van de respectieve natuurlijke remmers over alle acht doelwitten heen, wat suggereert dat PLB een soortgelijke affiniteit voor de bindingszakken heeft als deze gevalideerde actieve verbindingen. Deze bevinding geeft aan dat PLB, als een nieuw scaffoldmolecuul, kan fungeren als een veelbelovend chemisch uitgangspunt voor de ontwikkeling van nieuwe anti-prostaatkankeragentia die gericht zijn op deze oncogene hubs.
Prognostische waarde van doelwitten in prostaatkanker
Als representatieve doelen hebben we de prognostische betekenis van SRC en MAPK3 bij prostaatkanker beoordeeld met behulp van TCGA-datasets. Voor SRC toonde de analyse van de gradiëntverdeling aan dat een hogere SRC-expressie geassocieerd was met een verhoogde mortaliteit en significant kortere opvolg-overlevingstijden (Figuur 6A). Kaplan-Meier-overlevingsanalyse (Figuur 6B) bevestigde dat de groep met hoge expressie een aanzienlijk slechtere totale overleving had vergeleken met de groep met lage expressie (Log-rank P = 0,0317, HR = 9,708, 95% BI: 1,22–77,234). Cumulatieve risicocurves toonden een grotere kans op overlijden op elk tijdstip in de cohort met hoge expressie, waardoor SRC wordt aangemerkt als een risicofactor voor een slechte prognose. Tijdafhankelijke ROC-curves (Figuur 6C) toonden AUC-waarden van 0,99, 0,878 en 0,829 op respectievelijk 1, 3 en 5 jaar, allemaal boven de 0,7, wat wijst op uitstekende voorspellende prestaties voor zowel kortetermijn- als langetermijnoverleving. Samengevat suggereren deze bevindingen dat hoge SRC-expressie kan fungeren als een onafhankelijke moleculaire marker voor een ongunstige prognose bij prostaatkanker.
Voor MAPK3 toonde de gradiëntverdeling aan dat verhoogde expressie geassocieerd was met een sterkere tumorprogressie en een kortere progressievrije overleving, wat voorlopig suggereert dat MAPK3 een potentieel risicogen is (Figuur 7A). Uit de Kaplan-Meier-analyse van de progressievrije overleving (Figuur 7B) bleek dat de groep met hoge expressie significant een kortere progressievrije overleving had vergeleken met de groep met lage expressie (Log-rank P = 0,0298, HR = 1,581, 95% BI: 1,046–2,391), met een mediaan progressievrije overleving van slechts 5,8 jaar in de groep met hoge expressie. Cumulatieve risicocurves bevestigden verder een hogere kans op progressie op elk tijdstip. Tijdafhankelijke ROC-curves (Figuur 7C) toonden echter AUC-waarden van slechts 0,568, 0,563 en 0,574 op 1, 3 en 5 jaar, allemaal ver onder de 0,7, wat aangeeft dat MAPK3 alleen beperkte onafhankelijke voorspellende waarde heeft voor het risico op prostaatkankerprogressie. Over het geheel genomen correleert hoge MAPK3-expressie met een slechtere progressievrije overleving bij prostaatkanker, maar de bruikbaarheid ervan als enige prognostische indicator is beperkt door matige voorspellende nauwkeurigheid.
Verklaring betreffende de beschikbaarheid van gegevens
De originele bijdragen die in dit onderzoek worden gepresenteerd, zijn opgenomen in het artikel of in de aanvullende materialen.
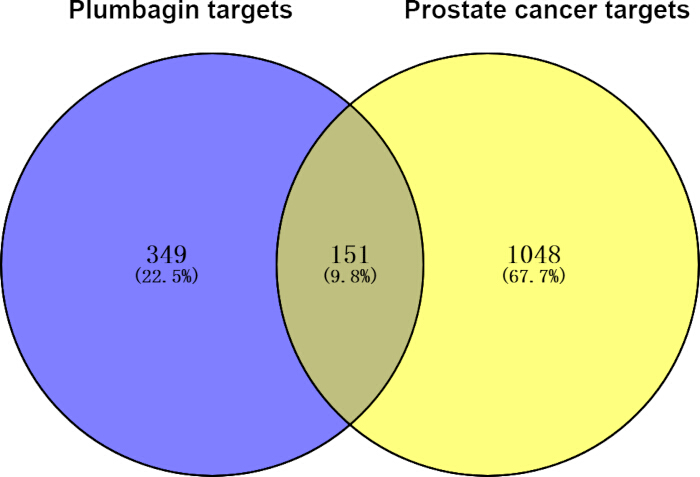
Figuur 1: Overlappende plumbagine- en prostaatkankertargets. Blauw geeft het aantal plumbaginetargets weer en geel het aantal prostaatkankertargets.
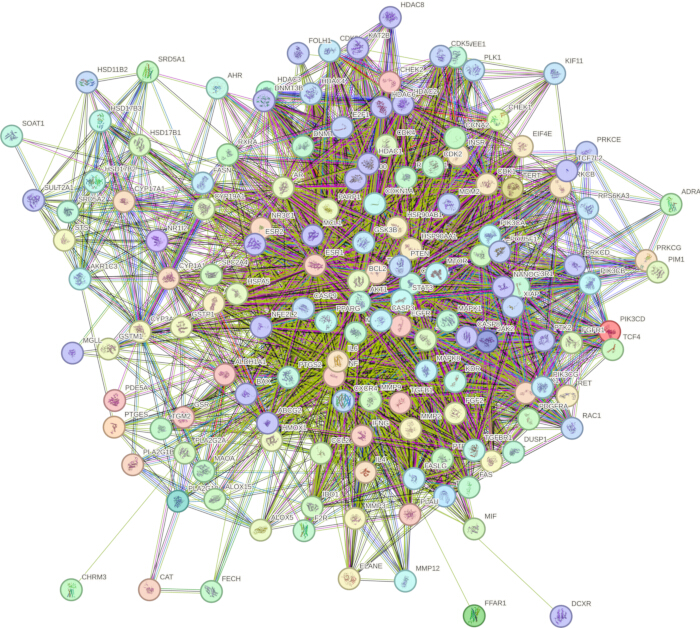
Figuur 2: Eiwit-eiwitinteractienetwerk van de 151 overlappende doelen. Klik hier om een grotere versie van dit figuur te bekijken.
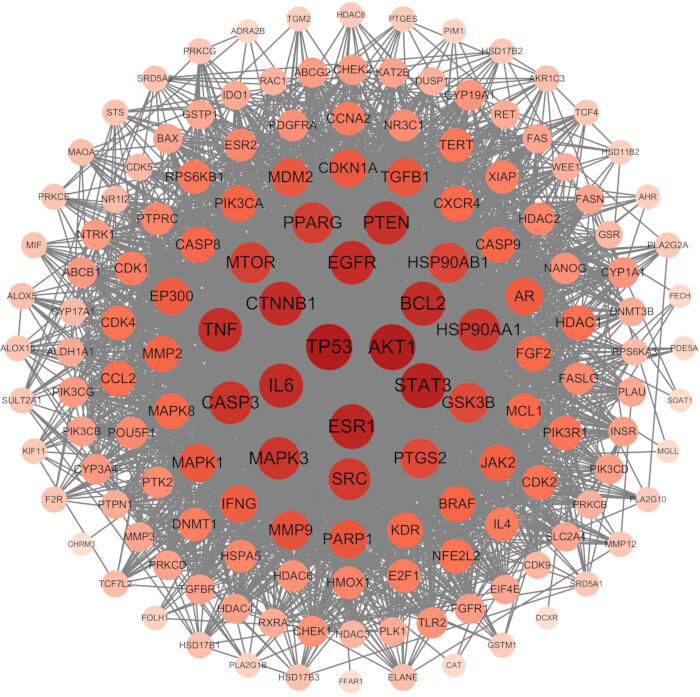
Figuur 3: Weergave van de 151 kern-doelen op basis van node-degree in het eiwit-eiwitinteractienetwerk. De grotere grootte en diepere kleur van de cirkels geven hogere degree-waarden in het netwerk weer. Klik hier om een grotere versie van dit figuur te bekijken.
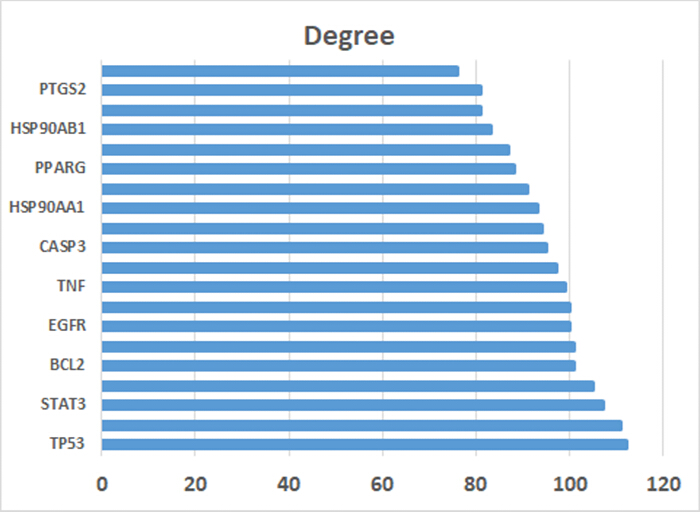
Figuur 4: Graadwaarden van de top 20 kerndoelen. Klik hier om een grotere versie van dit figuur te bekijken.
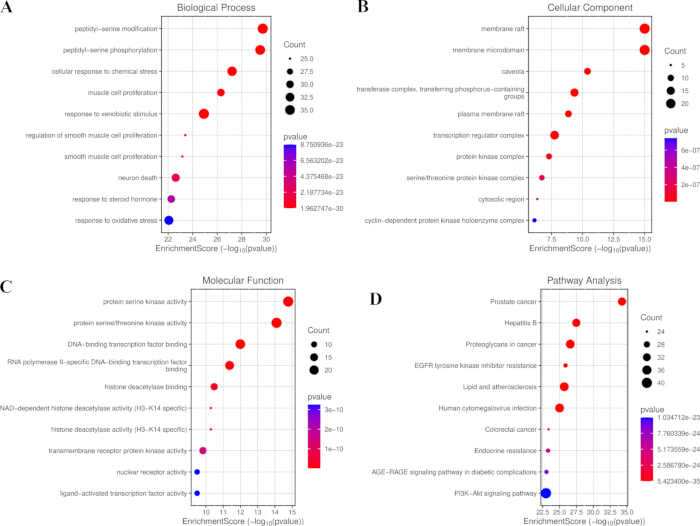
Figuur 5: Verrijkingsanalyse van de 151 kern-doelwitten. (A) De 10 meest significante termen in de categorie biologisch proces van de GO-analyse, (B) de 10 meest significante termen in de categorie cellulair component van de GO-analyse en (C) de 10 meest significante termen in de categorie moleculaire functie van de GO-analyse. (D) De 10 meest verrijkte KEGG-wegen van de 151 kern-doelwitten. Afkortingen: GO = Gene Ontology; KEGG = Kyoto Encyclopedia of Genes and Genomes. Klik hier om een grotere versie van deze figuur te bekijken.
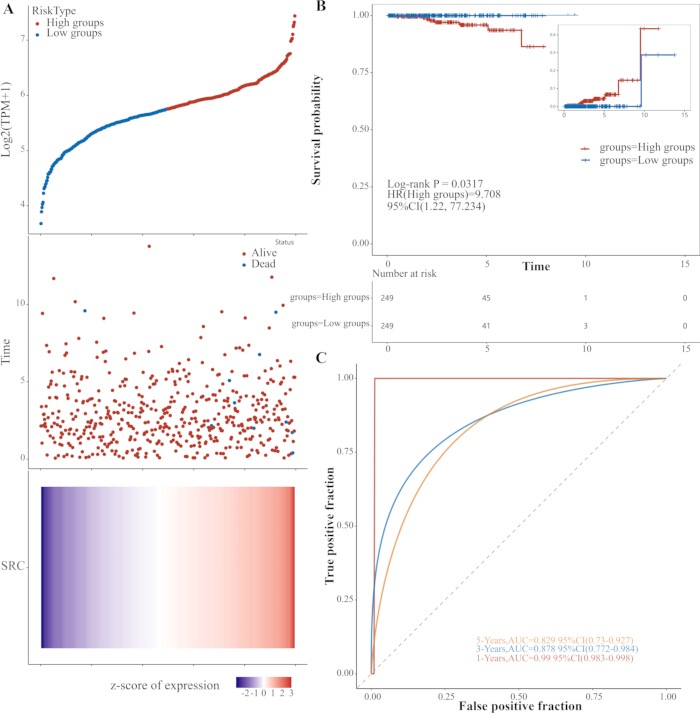
Figuur 6: Prognostische analyse van SRC bij prostaatkanker (TCGA). (A) Gradiëntverdeling van SRC-expressie op basis van overlevingsstatus en opvolgtijd. (B) Kaplan-Meier-overlevingscurves voor groepen met hoge versus lage SRC-expressie (Log-rank P = 0,0317, HR = 9,708, 95% BI: 1,22–77,234). (C) Tijdafhankelijke ROC-curves op 1, 3 en 5 jaar (AUC = 0,990, 0,878 en 0,829). Afkortingen: TCGA = The Cancer Genome Atlas; HR = hazard ratio; BI = betrouwbaarheidsinterval; ROC = receiver operating characteristic; AUC = oppervlak onder de curve. Klik hier om een grotere versie van deze afbeelding te bekijken.
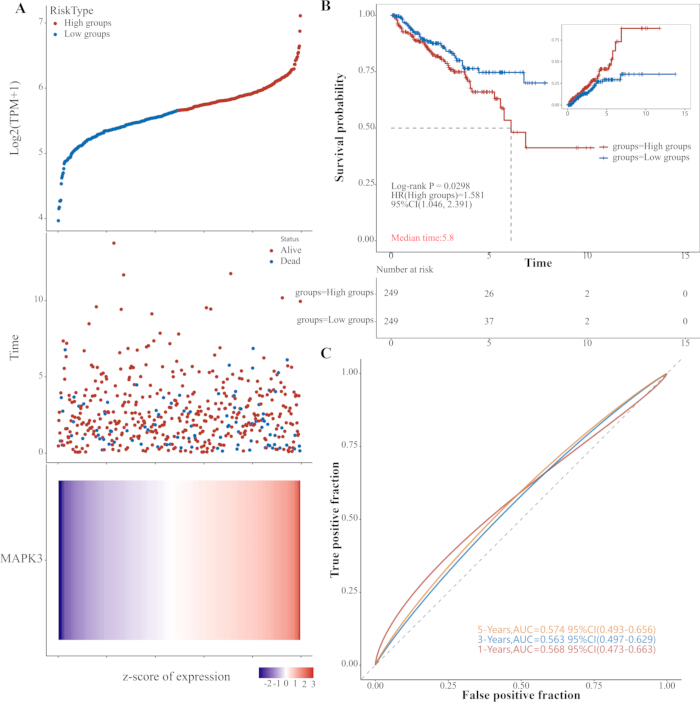
Figuur 7: Prognostische analyse van MAPK3 bij prostaatkanker (TCGA). (A) Gradiëntverdeling van MAPK3-expressie op basis van progressiestatus en progressievrije tijd. (B) Kaplan-Meier progressievrije overlevingscurven voor groepen met hoge versus lage MAPK3-expressie (Log-rank P = 0.0298, HR = 1.581, 95% CI: 1.046-2.391). (C) Tijdafhankelijke ROC-curven op 1, 3 en 5 jaar (AUC = 0.568, 0.563 en 0.574). Afkortingen: TCGA = The Cancer Genome Atlas; HR = hazard ratio; CI = betrouwbaarheidsinterval; ROC = receiver operating characteristic; AUC = area under the curve. Klik hier om een grotere versie van dit figuur te bekijken.
Tabel 1: Bindingsenergieën en interagerende residuen van plumbagin bij moleculaire docking met belangrijke doelmoleculen. De geciteerde referenties corresponderen met PDB-structuuringangen (kristallografische ligand-bindende zaktoewijzingen) in plaats van biologische validatiestudies, met de bijbehorende expliciet aangegeven PDB-ID's. Klik hier om deze tabel te downloaden.
Tabel 2: Bindingsenergieën en hun componenten van loodgini-doelwitcomplexen onder stationaire omstandigheden (kJ/mol). Er werd slechts één enkele 200 ns-trajectie per complex uitgevoerd met één enkele willekeurige snelheidsseed, zonder parallelle replicaten. Alle conformationele steekproeven werden gehaald uit het geëquilibreerde plateau-gebied, lopend van 100 tot 200 ns van elk traject. ΔEele stelt de electrostatische interactie tussen het kleine molecuul en het eiwit voor, ΔEvdw stelt de van der Waals-interactie voor, ΔEpol is de polaire solvatatie-energie, die de electrostatische potentiële energie kan weergeven, en ΔEnonpol is de niet-polare solvatatie-energie, die de hydrofobe interactie kan weergeven. ΔEMMPBSA = ΔEele + ΔEvdw + ΔEpol + ΔEnonpol. De Gibbs bindingsenergie, ΔGbind = ΔEMMPBSA + -TΔS. Klik hier om deze tabel te downloaden.
Tabel 3: Schematisch overzicht van wisselwerkende resten uit de moleculaire dynamica-simulatie van plumbagin met doeleiwitten. Klik hier om deze tabel te downloaden.
Tabel 4: Daanhechtingsvrije bindingsenergieën van plumbagin en de oorspronkelijk co-kristalliseerde remmers voor de negen doeleiwitten. Klik hier om deze tabel te downloaden.
Aanvullend bestand 1: Moleculaire dynamica-simulatieanalyses van de complexen van plumbagin met AKT1, ESR1, BCL2, EGFR, TNF-α, MAPK3, HSP90AA1, SRC en PPARG. Klik hier om dit bestand te downloaden.
Supplementaire Tabel S1: Mogelijke doelen van PLB voorspeld door de databases SwissTarget, SEA, TargetNet, PharmMapper, CTD, TCMSP en HERB.Klik hier om dit bestand te downloaden.
Supplementaire Tabel S2: Mogelijke doelen van prostaatkanker voorspeld door de GeneCards, DrugBank, TCMSP, CTD en HERB-databases.Klik hier om dit bestand te downloaden.
Supplementaire Tabel S3: GO-biologische processen verrijkt voor de 151 overlappende doelen van PLB en prostaatkanker.Klik hier om dit bestand te downloaden.
Supplementaire Tabel S4: GO-celcomponenten verrijkt voor de 151 overlappende doelen van PLB en prostaatkanker.Klik hier om dit bestand te downloaden.
Supplementaire Tabel S5: GO moleculaire functies verrijkt voor de 151 overlappende doelen van PLB en prostaatkanker.Klik hier om dit bestand te downloaden.
Supplementaire Tabel S6: KEGG-wegen die significant verrijkt zijn voor de 151 overlappende doelen van PLB en prostaatkanker.Klik hier om dit bestand te downloaden.
Discussie
Studies hebben aangetoond dat AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC en PPARG diverse rollen spelen bij het bevorderen van de progressie van kanker. De fosfatidylinositol 3-kinase (PI3K)/serine/threonine proteïnekinase (AKT)/mechanistic target of rapamycin (mTOR)-signaleringsroute is een cruciale intracellulaire signaaltransductieroute die diverse pathofysiologische processen reguleert, waaronder celgroei, proliferatie, apoptose, angiogenese, ontstekingsreacties en chemotaxis43. AKT is een belangrijk downstream doelkinase van PI3K, en p-AKT is essentieel voor de signaleringsroute. p-AKT oefent zijn anti-apoptotische effecten uit door het anti-apoptotische eiwit Bcl-2 te activeren en de activatie van het pro-apoptotische eiwit Bax te verminderen44. GSK3β is een belangrijke intracellulaire serine/threonine familiekinase en een belangrijk downstream doelmolecuul van AKT, dat de celcyclus, apoptose, celinvasie/metastase en angiogenese reguleert door deelname aan meerdere signaleringsroutes45. mTOR is een sterk geconserveerd serine/threonine proteïnekinase en een downstream doel van de PI3K/AKT-signaleringsroute. AKT fosforyleert mTOR om p-mTOR te vormen en te activeren, wat vervolgens de mRNA-translatie bevordert en fysiologische activiteiten reguleert zoals celmetabolisme, groei, proliferatie en overleving46.
EGFR en de liganden EGF en TGFα zijn aanwezig in zowel benigne als maligne cellen van de prostaat. De interactie tussen de liganden EGF/TGFα en EGFR speelt een belangrijke rol bij de groei en ontwikkeling van de prostaat, evenals bij de initiatie en progressie van prostaatkanker47. Visacorpi et al.48 stelden vast dat een hoge EGFR-expressie nauw geassocieerd is met hooggradige prostaatkanker en een slechte prognose. Ibrahim et al.49 rapporteerden dat de EGFR-expressie hoger is in normaal of benigne hyperplastisch prostaatweefsel dan in prostaatkankerreweefsel. Davies et al.50 vonden een negatieve correlatie tussen de expressie van de androgeenreceptor en de EGF-bindingsaffiniteit voor EGFR in prostaatkankermonsters, wat indirect suggereert dat activering van het EGF/EGFR-signaleringssysteem betrokken is bij de ontwikkeling en progressie van androgeenonafhankelijke prostaatkanker.
Het mitogeen-geactiveerde proteïnekinase (MAPK)-pad, ook bekend als de RAS/RAF/MEK/ERK-cascade, is een kritiek signaleringspad dat betrokken is bij celgroei, proliferatie en overleving. Mutaties in de kerncomponenten, waaronder RAS, RAF, MEK en ERK, worden frequent waargenomen bij diverse kankers en hebben een significante impact op de tumorontwikkeling en -progressie51. MAPK-signalering wordt gemedieerd door ERKs, serine/threonine-proteïnekinasen die fungeren als sleutelmoleculen voor signaaltransductie en de overdracht van signalen vanuit groeifactoren, hormonen, neurotransmitters en andere extracellulaire stimuli reguleren52. Hyperactivatie van componenten van dit pad, met name door mutaties of aberrante signalering, is geïmpliceerd bij talrijke kankertypen. De upstream-kinasen MEK1/2 activeren ERK1/2 direct aan het uiteinde van het pad. Geactiveerd ERK1/2 fosforyleert vervolgens een reeks nucleaire en cytoplasmatische substraten, waaronder transcriptiefactoren en regulatoire moleculen, waardoor snel de expressie van early response-genen wordt geïnduceerd die de celproliferatie controleren53,54. Uiteindelijk bevorderen deze geactiveerde eiwitten de expressie van downstream-effectormoleculen, wat oncogene transformatie of ongecontroleerde celproliferatie triggert en reguleert. Hiervan speelt ERK1 (MAPK3), als nauw verwante kinase in het MAPK/ERK-signaleringspad, een sleutelrol in de cellulaire signaaltransductie en is essentieel voor het reguleren van processen zoals celproliferatie, differentiatie en overleving bij kankers, waaronder prostaatkanker55.
Hittechoque-eiwitten (HSP's) zijn moleculaire chaperonnen die de degradatie van hun cliënt-eiwitten voorkomen. In menselijke kankers zijn HSP's vaak upgereguleerd en nauw verbonden met tumorprogressie, waarbij ze bijdragen aan tumorigenese, angiogenese, apoptose-resistentie en metastasering56,57. Door de stabiliteit van cliënt-eiwitten te handhaven, waaronder de androgeenreceptor (AR), oestrogeenreceptor (ER) en MYC, reguleren HSP's kritieke signaleringspaden zoals PI3K/Akt, JAK/STAT3, PKL1 en MAPK, wat uiteindelijk ongecontroleerde celgroei, aanhoudende angiogenese, ontsnapping aan apoptose, tumorinvasie en metastasering bevordert58,59,60. HSP90, een slegetel van deze familie, is geïdentificeerd als een potentieel therapeutisch doelwit bij prostaatkanker59,61,62. In prostaatkankercellen interacteert HSP90 met zowel AR-FL als AR-V7 en stabiliseert deze, waardoor hun ligandbindingscapaciteit behouden blijft, en de expressie van HSP90 correleert positief met de ziekteprogressie en AR-FL/AR-V7-niveaus63. Farmacologische remming van HSP90 bevordert de proteasomale degradatie van AR-FL en AR-V7, waardoor tumorgroei en metastasering in castratie-resistente prostaatkankercellen worden verminderd63. HSP90AA1 fungeert als chaperone tijdens de AR-activatie, en remming hiervan onderdrukt de AKT/mTOR- en PLK1-paden. Bovendien vermindert een verlaagde expressie van HSP90AA1 significant de migratie, invasie en proliferatie van prostaatkankercellen64.
ESR1 is één component van het duale oestrogenreceptorensysteem in de menselijke prostaat. ESR1 is upgereguleerd in hooggradige prostatische intra-epitheliale neoplasie (HGPIN), waarbij het waarschijnlijk de carcinogene effecten van estradiol medieert, en is betrokken bij de ontwikkeling van prostaatkanker en tumorprogressie. Voorlopige klinische studies met de ESR1-antagonist toremifene hebben ESR1 geïdentificeerd als een veelbelovend doelwit voor de preventie van prostaatkanker. Het gebruik van ESR1-antagonisten biedt een groot potentieel voor het voorkomen van prostaatkanker en het vertragen van de ziekteprogressie65.
PPARG, een lid van de superfamilie van nucleaire receptoren, is een belangrijke regulator van ontstekingsprocessen66. Na ligand-geïnduceerde heterodimerisatie met de retinoid X-receptor bindt PPARG aan PPAR-responselementen in het DNA om de transcriptie van diverse genen te reguleren. Activering van PPARG onderdrukt NF-κB- en MAPK-signalering, vermindert de productie van TNF-α en IL-6 en verzacht hiermee ontstekingsreacties67. Eerdere studies hebben aangetoond dat targeting van PPARG kan worden ingezet voor de behandeling van prostaatkanker68. Het PTGS2-eiwit is gelokaliseerd in de perinucleaire regio, geassocieerd met de membranen van de celkern en het endoplasmatisch reticulum. Het wordt snel tot expressie gebracht in geselecteerde cellen na specifieke stimulatie en neemt deel aan de bemiddeling van ontstekingsreacties69.
PLB is een van de belangrijkste antikankermiddelen tegen diverse kankertypes, waaronder prostaat-, long-, borst-, melanoom- en eierstokkanker19. PLB oefent zijn antikankereffecten uit door interactie met meerdere doelwitten en door invloed op cruciale signaleringspaden, waaronder AMPK, NFκB, PI3K/AKT/mTOR en STAT3/PLK1/AKT, waardoor apoptose wordt geïnduceerd, de celcyclus wordt gestopt en metastase en angiogenese worden geremd19,70. PLB kan ook apoptose induceren en de proliferatie en migratie van tumorcellen remmen door het mitochondriale membraanpotentiaal te verlagen, de ROS-spiegels te verhogen en de expressie van het Bcl-2-eiwit te downreguleren71,72. Deze resultaten gaven aan dat PLB meerdere cellulaire processen kan reguleren, waaronder de celcyclus, apoptose, de vorming van reactieve zuurstofsoorten, autofagie en het PI3K/Akt/mTOR-pad. Gezien de positieve rol van het PI3K/Akt/mTOR-signaleringspad bij de proliferatie van prostaatkankercellen/weefsels, is het targeten van dit pad een logische keuze geworden. Bovendien rapporteerden Hafeez et al. dat behandeling met PLB in een PTEN knockout-muismodel voor prostaatkanker de epitheliale-mesenchymale transitie, STAT3 en AKT-paden remde, welke cruciaal zijn voor de progressie van prostaatkanker73.
Het translationele potentieel van PLB wordt beïnvloed door de farmacokinetische eigenschappen en de biologische beschikbaarheid ervan. Als sterk lipofiele naftochinon vertoont PLB een slechte wateroplosbaarheid en een korte eliminatiehalfwaardetijd (35,89 ± 7,95 min) met een snelle klaring, wat de klinische toepassing beperkt74. Er zijn echter verschillende drug delivery-systemen ontwikkeld om deze beperkingen te overwinnen. Ge-PEGyleerde liposomen verlengden de halfwaardetijd met een factor 36,38 (1.305,76 ± 278,16 min) en de AUC met een factor 3,13 vergeleken met vrij PLB, terwijl ze een superieure antitumorale effectiviteit en een verlengde mediane overleving in muizen met melanomen vertoonden zonder significante toxiciteit.74 Andere strategieën, waaronder chitosan-microsferen (verlenging van de halfwaardetijd met een factor 22,2), temperatuurgevoelige liposomen en PLB-geconjugeerde goudnanodeeltjes en nano-emulsies, hebben op soortgelijke wijze verbeterde farmacokinetische profielen en een verhoogde antitumorale activiteit aangetoond75,76,77. Belangrijk is dat PLB een gunstig veiligheidsprofiel vertoont in preklinische modellen, waarbij bij therapeutische doses geen significante toxiciteit werd waargenomen in hematologische parameters of belangrijke organen74. Gezamenlijk suggereren onze computationele bevindingen dat PLB stabiel kan interageren met AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC en PPARG, waardoor hun functionele activiteit mogelijk wordt gemoduleerd en daarmee downstream-processen worden beïnvloed, waaronder de groei van kankercellen, proliferatie, apoptose, angiogenese, inflammatoire responsen en chemotaxis. Hoewel deze bevindingen computationeel van aard zijn en als hypothese-genererend moeten worden geïnterpreteerd, biedt het bestaande preklinische bewijs voor de antitumorale activiteit van PLB, samen met geavanceerde formulatiestrategieën, een sterke rationale voor verdere experimentele validatie. Toekomstige in vitro, in vivo en prospectieve cohortstudies zijn gerechtvaardigd om de voorspelde interacties en het therapeutische potentieel van PLB bij prostaatkanker te bevestigen.
De huidige studie heeft aangetoond dat PLB, naast het potentieel moduleren van pathways met betrekking tot AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC en PPARG, mogelijk ook interacteert met deze eiwitten, wat hun functionele activiteit kan beïnvloeden en daarmee downstream processen kan beïnvloeden zoals de groei, proliferatie, apoptose, angiogenese, ontstekingsreacties en chemotaxis van kankercellen. Deze bevindingen zijn echter van computationele aard en dienen te worden geïnterpreteerd als hypothese-genererend. Verdere in vitro, in vivo en prospectieve cohortstudies zijn gerechtvaardigd om de voorspelde interacties te valideren en het therapeutische potentieel van PLB bij prostaatkanker te bevestigen.
Ondanks de waardevolle inzichten die zijn verschaft door netwerkfarmacologie en moleculaire dynamicasimulaties, kent deze studie verschillende beperkingen. We erkennen dat het vertrouwen op openbare databanken bias kan introduceren door ongelijkmatige genannotatie en literatuurdekking. Hoewel cross-validatie via meerdere databanken is toegepast om dit probleem te minimaliseren, vereisen alle computationele voorspellingen experimentele bevestiging. Er dient te worden opgemerkt dat er slechts één trajectie van 200 ns per complex is uitgevoerd met één willekeurige snelheid-seed, zonder parallelle replica's. Deze beperking kan de statistische robuustheid van de MM-PBSA vrije energieën beïnvloeden, hoewel we dit hebben beperkt door de simulatielengte te verlengen en de eerste 100 ns als equilibratie te verwerpen. De gerapporteerde bindingsaffiniteiten moeten daarom worden geïnterpreteerd als kwalitatieve schattingen, en toekomstige replica-simulaties zouden waardevol zijn voor validatie. Aangezien dit een puur computationele analyse is, ontbreekt in deze studie in vitro of in vivo validatie; daarom bevestigt de voorspelde binding van PLB aan AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC en PPARG geen functionele inhibitie in biologische systemen. Bovendien gaat de studie niet in op doelspecificiteit, cellulaire biobeschikbaarheid of in vivo farmacokinetiek. Om de huidige bevindingen te valideren of te vervangen, zouden alternatieve experimentele benaderingen surface plasmon resonance of isotherme titratiecalorimetrie moeten omvatten om de directe bindingsaffiniteit te meten, kinase-activiteitsassays om enzymatische inhibitie te bevestigen, western blotting om downstream signalering te beoordelen (bijv. p-AKT, p-EGFR), en celgebaseerde functionele assays (zoals MTT, flowcytometrie) om proliferatie en apoptose in prostaatkankercellen te evalueren. Verder zijn CRISPR-Cas9 of siRNA-gemedieerde knockdown van individuele targets, samen met in vivo muis-xenograftmodellen, essentieel om causale rollen en therapeutische relevantie vast te stellen. Deze experimentele validaties zijn noodzakelijk om verder te gaan dan computationele voorspellingen naar biologisch betekenisvolle conclusies.
Concluderend suggereert deze studie, gebruikmakend van netwerkfarmacologie, moleculaire docking en moleculaire dynamicasimulaties, dat PLB mogelijk interacteert met en de activiteiten van AKT1, ESR1, BCL2, EGFR, TNF, MAPK3, HSP90AA1, SRC en PPARG moduleert, waardoor de biologische functies van tumorcellen worden beïnvloed. Aangezien deze bevindingen echter puur computationeel zijn, moeten ze worden geïnterpreteerd als hypothese-genererend en niet als concluderend. Over het geheel genomen bieden onze resultaten nieuwe inzichten en een theoretische basis voor toekomstige experimentele onderzoeken naar de mechanismen van PLB bij de behandeling van prostaatkanker, hoewel in vitro en in vivo studies essentieel zijn om de feitelijke remmende effecten en het therapeutische potentieel te bevestigen.
Openbaarmakingen
De auteurs hebben geen belangenconflicten te melden.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Comparative Toxicogenomics Database | National Institute of Environmental Health Sciences, National Institute of Neurological Disorders and Stroke | https://ctdbase.org/ | CTD is een robuuste, publiek toegankelijke database die erop is gericht het inzicht te vergroten in hoe blootstelling aan omgevingsfactoren de menselijke gezondheid beïnvloedt. Het biedt handmatig gecureerde informatie over interacties tussen chemicaliën en genen/eiwitten, en relaties tussen chemicaliën en ziekten en tussen genen en ziekten. Deze gegevens zijn geïntegreerd met functionele gegevens en padgegevens om te helpen bij de ontwikkeling van hypothesen over de mechanismen die ten grond liggen aan door milieu-invloeden veroorzaakte ziekten. |
| Cytoscape | Institute for Systems Biology, ISB, Leroy Hood | https://cytoscape.org/ | De software, die aanvankelijk specifiek werd ontworpen voor biomoleculaire interactienetwerken, is inmiddels geëvolueerd tot een veelzijdig platform voor het analyseren van complexe netwerken en wordt breed toegepast in vakgebieden zoals de bio-informatica, systemische geneeskunde, sociale netwerken en semantische netwerken. |
| DAVID-database | National Institutes of Health (NIH) | https://davidbioinformatics.nih.gov/list.jsp | DAVID, een afkorting voor Database for Annotation, Visualization and Integrated Discovery, is het meest klassieke en meest gebruikte gratis online platform voor functionele annotatie en enrichment-analyse van genensets |
| DrugBank | University of Alberta, Canada | https://go.drugbank.com/ | DrugBank is het intelligentie-besturingssysteem voor de biofarmacie en levert de meest uitgebreide, gestructureerde biomedische kennis om therapieën te helpen versnellen van ontdekking tot impact op de patiënt. |
| GeneCard | LifeMap Sciences | https://www.genecards.org/ | GeneCards is een doorzoekbare, integratieve database die uitgebreide en gebruiksvriendelijke informatie biedt over alle geannoteerde en voorspelde menselijke genen. De kennisbank integreert automatisch gengecentreerde gegevens uit 193 webbronnen, waaronder genomische, transcriptomische, proteomische, genetische, klinische en functionele informatie. |
| gmx_MMPBSA | Columbia Universiteit van Medellín | https://valdes-tresanco-ms.github.io/gmx_MMPBSA/ | gmx_MMPBSA, een open-source instrument voor vrije-energieberekeningen ontwikkeld door Valdés-Tresanco et al. werd gebruikt om bindingsvrije energieën te berekenen op basis van MM/PBSA- en MM/GBSA-methodologieën. Gebouwd op de MMPBSA.py-engine van AmberTools, verwerkt het direct trajectbestanden gegenereerd door GROMACS zonder handmatige formaatconversie. Energie-decompositie per residu, computationele alanine-scanning en entropiecorrectie werden uitgevoerd om de bindingsbijdragen van sleutelaminozuren te kwantificeren, en de ingebouwde gmx_MMPBSA_ana-module werd gebruikt voor de statistische analyse en visualisatie van energiecomponenten. |
| GROMACS | Koninklijk Technisch Instituut (KTH), Universiteit van Uppsala | www.gromacs.org | GROMACS is een veelzijdig pakket voor het uitvoeren van moleculaire dynamica, oftewel het simuleren van de Newtoniaanse bewegingsvergelijkingen voor systemen met honderden tot miljoenen deeltjes, en is een door de gemeenschap gedreven project. Bijdragen zijn in vele vormen welkom, waaronder verbeteringen aan de documentatie, patches om bugs te verhelpen, advies op de forums, bugrapporten waarmee het probleem gereproduceerd kan worden en nieuwe functionaliteit. |
| KRUID | Beijing University of Chinese Medicine, Beijing University of Chinese Medicine. | http://herb.ac.cn/ | Een high-throughput experimentele en referentiegestuurde database van traditionele Chinese geneeskunde. |
| PharmMapper | School of Pharmaceutical Science and Technology / School of Information Science and Engineering, East China University of Science and Technology | https://www.lilab-ecust.cn/pharmmapper/index.html | PharmMapper Server is een freely accessed webserver die is ontworpen om potentiële targetkandidaten te identificeren voor gegeven probe-kleine moleculen (geneesmiddelen, natuurproducten of andere nieuw ontdekte verbindingen waarvan de bindingsdoelen niet zijn geïdentificeerd) met behulp van een farmacofoor-mappingbenadering. Dankzij de zeer efficiënte en robuuste mappingmethode beschikt PharmMapper over een hoge doorvoercapaciteit en kan het potentiële targetkandidaten uit de database binnen enkele uren identificeren. |
| PubChem | National Institutes of Health (NIH) | https://pubchem.ncbi.nlm.nih.gov/ | PubChem is een open chemische database van de National Institutes of Health (NIH) |
| PyMOL | Het lijkt erop dat uw bericht onvolledig is. Kunt u de volledige tekst aanleveren die u wilt laten vertalen?ödinger | https://pymol.org | PyMOL, oorspronkelijk ontwikkeld door Warren Lyford DeLano en momenteel onderhouden door SchröPyMOL, ontwikkeld door Schrödinger, Inc., is een crossplatform tool voor moleculaire visualisatie die op grote schaal wordt gebruikt in de structurele biologie en bij computerondersteund geneesmiddelenonderzoek. Protein-ligand-complexstructuren, gedownload uit de RCSB PDB, werden in PyMOL geladen om bindingsconformaties, waterstofbruggen en cruciale interagerende residuen te visualiseren. Structurele superpositie, oppervlakte-rendering en moleculaire graphics van hoge resolutie en publicatiekwaliteit werden gegenereerd via de ingebouwde Python-scriptinterface. |
| RCSB Protein Data Bank | Onderzoekscollaboratorium voor Structurele Bio-informatica | https://www.rcsb.org/ | RCSB PDB (Research Collaboratory for Structural Bioinformatics Protein Data Bank) dient als het Amerikaanse datacenter van het Worldwide Protein Data Bank (wwPDB) consortium, dat in 1998 werd opgericht en wordt geleid door Helen M. Berman. Het archiveert experimenteel bepaalde driedimensionale atomaire structuren van eiwitten, nucleïnezuren en hun complexen, opgelost via röntgendiffractie, cryo-elektronenmicroscopie en NMR-spectroscopie, en integreert miljoenen door AI voorspelde eiwitstructuurmodellen van AlphaFold. Het webportaal ondersteunt multidimensionaal zoeken, realtime 3D-moleculaire visualisatie, batchdownload van coördinaatbestanden en kruisverwijzingsannotaties die structurele gegevens koppelen aan genfunctie, ziekten en kleine molecuulliganden, wat op grote schaal wordt gebruikt voor target-identificatie en moleculaire docking-studies. |
| SEA | Shoichet Laboratory van het Department of Pharmaceutical Chemistry aan de University of California, San Francisco (UCSF) | https://sea.bkslab.org/ | de Similarity Ensemble Approach (SEA) relateert proteïnen op basis van de setgewijze chemische gelijkenis tussen hun liganden. Het kan worden gebruikt om snel grote verbindingendatabanken te doorzoeken en om cross-target gelijkeniskaarten op te stellen |
| STRING-database | Global Biodata Coalition en ELIXIR. | https://cn.string-db.org/ | STRING is een database van bekende en voorspelde eiwit-eiwitinteracties. De interacties omvatten zowel directe (fysieke) als indirecte (functionele) associaties; deze zijn afgeleid van computationele voorspellingen, van kennisoverdracht tussen organismen en van interacties die zijn samengevoegd uit andere (primaire) databases. |
| Swiss Dock webserver | Molecular Modelling Group van de Universiteit van Lausanne en het SIB Swiss Institute of Bioinformatics | https://www.swissdock.ch/ | SwissDock is een webdienst die de moleculaire interacties voorspelt die waarschijnlijk zullen plaatsvinden tussen een doeleiwit en een klein molecuul. |
| SwissTarget | Molecular Modeling Group van het SIB | Swiss Institute of Bioinformatics | https://swisstargetprediction.ch/index.php | Deze website stelt u in staat om de meest waarschijnlijke macromoleculaire targets van een klein molecuul, waarvan wordt aangenomen dat het bioactief is, te schatten. De voorspelling is gebaseerd op een combinatie van 2D- en 3D-gelijkenis met een bibliotheek van 370.000 bekende actieve stoffen op meer dan 3000 eiwitten van drie verschillende soorten. |
| TargetNet | Computationele biologie & Drug Design Groep | http://targetnet.scbdd.com/calcnet/index/ | TargetNet is een open webserver die kan worden gebruikt voor het netwerken of voorspellen van de binding van meerdere targets voor een willekeurig gegeven molecuul |
| Systeemfarmacologische database en analyseplatform voor traditionele Chinese geneeskunde | Zhejiang Jiwei Health Co., Ltd | https://www.tcmsp-e.com/index.php | TCMSP is een uniek systeemfarmacologisch platform voor Chinese kruidengeneesmiddelen dat de relaties tussen geneesmiddelen, targets en ziekten vastlegt. De database bevat chemicaliën, targets en geneesmiddel-targetnetwerken, en geassocieerde geneesmiddel-target-ziektenetwerken, alsook farmacokinetische eigenschappen voor natuurlijke verbindingen met betrekking tot orale biologische beschikbaarheid, drug-likeness, permeabiliteit van het epitheel van de darm en de bloed-hersenbarrière, wateroplosbaarheid e.d. Deze doorbraak heeft geleid tot een hernieuwde interesse in de zoektocht naar kandidaatmedicijnen in diverse soorten traditionele Chinese kruiden. |
| UniProt-database | European Bioinformatics Institute (EMBL-EBI), het SIB Swiss Institute of Bioinformatics en de Protein Information Resource (PIR) | https://www.uniprot.org/ | UniProt is de wereldwijde’de belangrijkste hoogwaardige, uitgebreide en vrij toegankelijke bron van eiwitsequentie- en functionele informatie |
| Venny 2.1 online tool | Centro Nacional de Biotecnologíaía, (CNB-CSIC) | https://bioinfogp.cnb.csic.es/tools/venny/index.html | Venny bestaat uit een enkel standaard html-bestand. Sla dit bestand gerust op uw harde schijf op, open het met uw favoriete browser en begin binnen enkele seconden met het tekenen van mooie Venn-diagrammen, zelfs zonder internetverbinding. |
| VMD | Theoretical and Computational Biophysics Research Group (TCBG) bij het Beckman Institute, University of Illinois at Urbana Champaign, VS | Visual Molecular Dynamics (VMD) VMD is een programma voor het analyseren en visualiseren van biomoleculaire systemen, zoals eiwitten en nucleïnezuren, waarbij gebruik wordt gemaakt van dynamische simulaties, röntgendiffractie- en cryo-elektronenmicroscopiegegevens. VMD is ontworpen om grote moleculen te visualiseren, waarbij gebruik wordt gemaakt van een versnellingsmechanisme voor het renderen van graphics dat onafhankelijk is van de totale grootte van het molecuul. Het programma biedt een uitgebreide set instrumenten voor de analyse van moleculaire systemen, waaronder tools voor het berekenen van waterstofbruggen, het analyseren van de RMSD (root-mean-square deviation), het berekenen van de solvent-accessible surface area (SASA) en meer. VMD is een open-source programma en kan gratis worden gedownload voor academisch en niet-commercieel gebruik. | VMD (Visual Molecular Dynamics) is een gratis crossplatform software voor moleculaire visualisatie en trajectanalyse, ontwikkeld door de Theoretical and Computational Biophysics Group onder leiding van professor Klaus Schulten aan de University of Illinois Urbana-Champaign. Het ondersteunt standaard PDB-structuren en MD-trajecten gegenereerd door GROMACS, NAMD en Amber, met diverse stijlen voor moleculaire rendering en een ingebouwde Tcl-scriptinterface. Kwantitatieve analyses, waaronder RMSD, bezettingsgraad van waterstofbruggen, SASA en de geometrie van de ligand-bindingspocket, werden uitgevoerd om dynamische eiwit-ligandinteracties en conformationele fluctuaties te karakteriseren. |
Referenties
- Bray F, et al. Global cancer statistics 2022: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2024;74(3):229-63.
- Loeb S, et al. Overdiagnosis and overtreatment of prostate cancer. Eur Urol. 2014;65(6):1046-55.
- James ND, et al. The Lancet Commission on prostate cancer: planning for the surge in cases. Lancet. 2024;403(10437):1683-722.
- Bussard KM, Gay CV, Mastro AM. The bone microenvironment in metastasis: what is special about bone? Cancer Metastasis Rev. 2008;27(1):41-55.
- Keller ET, et al. New trends in the treatment of bone metastasis. J Cell Biochem. 2007;102(5):1095-102.
- Kingsley LA, Fournier PG, Chirgwin JM, Guise TA. Molecular biology of bone metastasis. Mol Cancer Ther. 2007;6(10):2609-17.
- Valdespino V, Tsagozis P, Pisa P. Current perspectives in the treatment of advanced prostate cancer. Med Oncol. 2007;24(3):273-86.
- Albertsen P. Predicting survival for men with clinically localized prostate cancer: what do we need in contemporary practice? Cancer. 2008;112(1):1-3.
- So A, Gleave M, Hurtado-Col A, Nelson C. Mechanisms of the development of androgen independence in prostate cancer. World J Urol. 2005;23(1):1-9.
- Gupta S. Prostate cancer chemoprevention: current status and future prospects. Toxicol Appl Pharmacol. 2007;224(3):369-76.
- Patel D, Shukla S, Gupta S. Apigenin and cancer chemoprevention: progress, potential, and promise. Int J Oncol. 2007;30(1):233-45.
- Kallifatidis G, Hoy JJ, Lokeshwar BL. Bioactive natural products for chemoprevention and treatment of castration-resistant prostate cancer. Semin Cancer Biol. 2016;40-41:160-9.
- Montuori E, et al. Marine natural products with activities against prostate cancer: recent discoveries. Int J Mol Sci. 2023;24(2):1435.
- de Paiva SR, Figueiredo MR, Aragão TV, Kaplan MAC. Antimicrobial activity in vitro of plumbagin isolated from Plumbago species. Mem Inst Oswaldo Cruz. 2003;98(7):959-61.
- Luo P, et al. Anti-inflammatory and analgesic effect of plumbagin through inhibition of nuclear factor-κB activation. J Pharmacol Exp Ther. 2010;335(3):735-42.
- Sharma I, Gusain D, Dixit VP. Hypolipidaemic and antiatherosclerotic effects of plumbagin in rabbits. Indian J Physiol Pharmacol. 1991;35(1):10-4.
- Awale S, et al. Targeting pancreatic cancer with novel plumbagin derivatives: design, synthesis, molecular mechanism, in vitro and in vivo evaluation. J Med Chem. 2023;66(12):8054-65.
- Zhang R, Jiang Q, Guo R, Guo K, Qiu J. Unveiling the power of plumbagin: revitalizing exhausted T cells to combat tongue cancer. Cancer Cell Int. 2025;25(1):271.
- Panichayupakaranant P, Ahmad MI. Plumbagin and its role in chronic diseases. Adv Exp Med Biol. 2016;929:229-46.
- Kuete V, et al. Cytotoxicity of plumbagin, rapanone, and 12 other naturally occurring quinones from Kenyan flora towards human carcinoma cells. BMC Pharmacol Toxicol. 2016;17(1):60.
- Gharbaran R, Shi C, Onwumere O, Redenti S. Plumbagin induces cytotoxicity via loss of mitochondrial membrane potential and caspase activation in metastatic retinoblastoma. Anticancer Res. 2021;41(10):4725-32.
- Aziz MH, Dreckschmidt NE, Verma AK. Plumbagin, a medicinal plant-derived naphthoquinone, is a novel inhibitor of the growth and invasion of hormone-refractory prostate cancer. Cancer Res. 2008;68(21):9024-32.
- Powolny AA, Singh SV. Plumbagin-induced apoptosis in human prostate cancer cells is associated with modulation of cellular redox status and generation of reactive oxygen species. Pharm Res. 2008;25(9):2171-80.
- Qiu JX, et al. Plumbagin elicits differential proteomic responses mainly involving cell cycle, apoptosis, autophagy, and epithelial-to-mesenchymal transition pathways in human prostate cancer PC-3 and DU145 cells. Drug Des Devel Ther. 2015;9:349-417.
- Wang F, et al. Plumbagin induces cell cycle arrest and autophagy and suppresses epithelial-to-mesenchymal transition involving the PI3K/Akt/mTOR-mediated pathway in human pancreatic cancer cells. Drug Des Devel Ther. 2015;9:537-60.
- Lai L, et al. Plumbagin inhibits tumour angiogenesis and tumour growth through the Ras signalling pathway following activation of the VEGF receptor-2. Br J Pharmacol. 2012;165(4b):1084-96.
- Wu WI, et al. Crystal structure of human AKT1 with an allosteric inhibitor reveals a new mode of kinase inhibition. PLoS One. 2010;5(9):e12913.
- Bai L, et al. A potent and selective small-molecule degrader of STAT3 achieves complete tumor regression in vivo. Cancer Cell. 2019;36(5):498-511.e17.
- Fanning SW, et al. The SERM/SERD bazedoxifene disrupts ESR1 helix 12 to overcome acquired hormone resistance in breast cancer cells. Elife. 2018;7:e37161.
- Suraweera CD, Caria S, Järvå M, Hinds MG, Kvansakul M. A structural investigation of NRZ-mediated apoptosis regulation in zebrafish. Cell Death Dis. 2018;9(10):967.
- Boulanger MJ, Chow DC, Brevnova EE, Garcia KC. Hexameric structure and assembly of the interleukin-6/IL-6 α-receptor/gp130 complex. Science. 2003;300(5628):2101-4.
- Jia Y, et al. Overcoming EGFR(T790M) and EGFR(C797S) resistance with mutant-selective allosteric inhibitors. Nature. 2016;534(7605):129-32.
- Dos Santos Nascimento IJ, da Silva-Júnior EF. TNF-α inhibitors from natural compounds: an overview, CADD approaches, and their exploration as anti-inflammatory agents. Comb Chem High Throughput Screen. 2022;25(14):2317-40.
- Chaikuad A, et al. A unique inhibitor binding site in ERK1/2 is associated with slow binding kinetics. Nat Chem Biol. 2014;10(10):853-60.
- Brasca MG, et al. Discovery of NMS-E973 as a novel, selective, and potent inhibitor of heat shock protein 90. Bioorg Med Chem. 2013;21(22):7047-63.
- Gurbani D, et al. Structure and characterization of a covalent inhibitor of Src kinase. Front Mol Biosci. 2020;7:81.
- Gellrich L, et al. L-thyroxin and the nonclassical thyroid hormone TETRAC are potent activators of PPARγ. J Med Chem. 2020;63(13):6727-40.
- Weng Z, Shen X, Zheng J, Liang H, Liu Y. Structural basis of DEPTOR to recognize phosphatidic acid using its tandem DEP domains. J Mol Biol. 2021;433(13):166989.
- Huck JD, et al. Structures of Hsp90α and Hsp90β bound to a purine-scaffold inhibitor reveal an exploitable residue for drug selectivity. Proteins. 2019;87(10):869-77.
- Luo G, et al. Discovery of isonicotinamides as highly selective, brain-penetrable, and orally active glycogen synthase kinase-3 inhibitors. J Med Chem. 2016;59(3):1041-51.
- Orlando BJ, Malkowski MG. Crystal structure of rofecoxib bound to human cyclooxygenase-2. Acta Crystallogr F Struct Biol Commun. 2016;72(Pt 10):772-6.
- Nuti E, et al. Development of thioaryl-based matrix metalloproteinase-12 inhibitors with alternative zinc-binding groups: synthesis, potentiometric, NMR, and crystallographic studies. J Med Chem. 2018;61(10):4421-35.
- Li Q, Li Z, Luo T, Shi H. Targeting the PI3K/AKT/mTOR and RAF/MEK/ERK pathways for cancer therapy. Mol Biomed. 2022;3(1):47.
- Wang B, et al. Propofol protects against hydrogen peroxide-induced injury in cardiac H9c2 cells via Akt activation and Bcl-2 up-regulation. Biochem Biophys Res Commun. 2009;389(1):105-11.
- Majewska E, Szeliga M. AKT/GSK3β signaling in glioblastoma. Neurochem Res. 2017;42(3):918-24.
- Yang H, et al. mTOR kinase structure, mechanism, and regulation. Nature. 2013;497(7448):217-23.
- Fong CJ, Sherwood ER, Mendelsohn J, Lee C, Kozlowski JM. Epidermal growth factor receptor monoclonal antibody inhibits constitutive receptor phosphorylation, reduces autonomous growth, and sensitizes androgen-independent prostatic carcinoma cells to tumor necrosis factor α. Cancer Res. 1992;52(21):5887-92.
- Visakorpi T, Kallioniemi OP, Koivula T, Harvey J, Isola J. Expression of epidermal growth factor receptor and ERBB2 (HER-2/Neu) oncoprotein in prostatic carcinomas. Mod Pathol. 1992;5(6):643-8.
- Ibrahim GK, et al. Differential immunoreactivity of epidermal growth factor receptor in benign, dysplastic, and malignant prostatic tissues. J Urol. 1993;149(1):170-3.
- Davies P, Eaton CL. Binding of epidermal growth factor by human normal, hypertrophic, and carcinomatous prostate. Prostate. 1989;14(2):123-32.
- Bahar ME, Kim HJ, Kim DR. Targeting the RAS/RAF/MAPK pathway for cancer therapy: from mechanism to clinical studies. Signal Transduct Target Ther. 2023;8(1):455.
- Guo YJ, et al. ERK/MAPK signalling pathway and tumorigenesis. Exp Ther Med. 2020;19(3):1997-2007.
- Ullah R, Yin Q, Snell AH, Wan L. RAF-MEK-ERK pathway in cancer evolution and treatment. Semin Cancer Biol. 2022;85:123-54.
- Chambard JC, Lefloch R, Pouysségur J, Lenormand P. ERK implication in cell cycle regulation. Biochim Biophys Acta. 2007;1773(8):1299-310.
- Gesmundo I, et al. Proton pump inhibitors promote the growth of androgen-sensitive prostate cancer cells through ErbB2, ERK1/2, PI3K/Akt, GSK-3β signaling and inhibition of cellular prostatic acid phosphatase. Cancer Lett. 2019;449:252-62.
- Schopf FH, Biebl MM, Buchner J. The HSP90 chaperone machinery. Nat Rev Mol Cell Biol. 2017;18(6):345-60.
- García-Alonso S, et al. Structure of the RAF1-HSP90-CDC37 complex reveals the basis of RAF1 regulation. Mol Cell. 2022;82(18):3438-52.e8.
- Chiosis G, Digwal CS, Trepel JB, Neckers L. Structural and functional complexity of HSP90 in cellular homeostasis and disease. Nat Rev Mol Cell Biol. 2023;24(11):797-815.
- Li J, Buchner J. Structure, function, and regulation of the Hsp90 machinery. Biomed J. 2013;36(3):106-17.
- Youssef ME, et al. Role of ganetespib, an HSP90 inhibitor, in cancer therapy: from molecular mechanisms to clinical practice. Int J Mol Sci. 2023;24(5):5014.
- Solit DB, Scher HI, Rosen N. Hsp90 as a therapeutic target in prostate cancer. Semin Oncol. 2003;30(5):709-16.
- Hoter A, Rizk S, Naim HY. The multiple roles and therapeutic potential of molecular chaperones in prostate cancer. Cancers (Basel). 2019;11(8):1194.
- Moon SJ, et al. Bruceantin targets HSP90 to overcome resistance to hormone therapy in castration-resistant prostate cancer. Theranostics. 2021;11(2):958-73.
- Li J, et al. Androgen-targeted hsa_circ_0085121 encodes a novel protein and improves the development of prostate cancer through facilitating the activity of the PI3K/Akt/mTOR pathway and enhancing AR-V7 alternative splicing. Cell Death Dis. 2024;15(11):848.
- Taneja SS, et al. Toremifene: a promising therapy for the prevention of prostate cancer and complications of androgen deprivation therapy. Expert Opin Investig Drugs. 2006;15(3):293-305.
- Yang J, et al. Protective effect of Fuzi Lizhong decoction against non-alcoholic fatty liver disease via an anti-inflammatory response through regulation of p53 and PPARG signaling. Biol Pharm Bull. 2020;43(11):1626-33.
- Sui Q, et al. Ganoderic acid A: an in-depth review of pharmacological effects and molecular docking analysis. J Ethnopharmacol. 2025;349:119868.
- Zhang T, et al. PPARG is a potential target of Tanshinone IIA in prostate cancer treatment: a combination study of molecular docking and dynamic simulation based on transcriptomic bioinformatics. Eur J Med Res. 2023;28(1):487.
- Astakhova A, et al. Inhibitors of oxidative phosphorylation modulate astrocyte inflammatory responses through AMPK-dependent Ptgs2 mRNA stabilization. Cells. 2019;8(10):1185.
- Liu Y, Cai Y, He C, Chen M, Li H. Anticancer properties and pharmaceutical applications of plumbagin: a review. Am J Chin Med. 2017;45(3):423-41.
- Ahmad I, et al. Synergistic inhibition of colon cancer cell proliferation via p53, Bax, and Bcl-2 modulation by curcumin and plumbagin combination. ACS Omega. 2025;10(18):19045-60.
- Bello IJ, Oyebode OT, Olanlokun JO, Omodara TO, Olorunsogo OO. Plumbagin induces testicular damage via mitochondrial-dependent cell death. Chem Biol Interact. 2021;347:109582.
- Hafeez BB, et al. Plumbagin inhibits prostate carcinogenesis in intact and castrated PTEN knockout mice via targeting PKCε, Stat3, and epithelial-to-mesenchymal transition markers. Cancer Prev Res (Phila). 2015;8(5):375-86.
- Kumar MR, et al. Formulation of plumbagin-loaded long-circulating pegylated liposomes: in vivo evaluation in C57BL/6J mice bearing B16F1 melanoma. Drug Deliv. 2011;18(7):511-22.
- Mandala Rayabandla SK, et al. Preparation, in vitro characterization, pharmacokinetic, and pharmacodynamic evaluation of chitosan-based plumbagin microspheres in mice bearing B16F1 melanoma. Drug Deliv. 2010;17(3):103-13.
- Tiwari SB, Pai RM, Udupa N. Temperature-sensitive liposomes of plumbagin: characterization and in vivo evaluation in mice bearing melanoma B16F1. J Drug Target. 2002;10(8):585-91.
- Onoue S, Yamada S, Chan HK. Nanodrugs: pharmacokinetics and safety. Int J Nanomedicine. 2014;9:1025-37.