Xenograft-modellen - afgeleid van cellijnen (CDX), afgeleid van patiënten (PDX), gehumaniseerd en autoloog - blijven het primaire in vivo platform voor de ontwikkeling van geneesmiddelen tegen kanker; gestandaardiseerde rapportage, een rationele selectie van het platform en AI-gestuurde translatie definiëren de huidige best practice.
Reviewartikel
Gestandaardiseerde xenograftmodellen voor preklinisch kankeronderzoek
In dit artikel
Samenvatting
Samenvatting
Xenograftmodellen vormen het belangrijkste in vivo platform voor de preklinische oncologie en de meest gevestigde experimentele schakel tussen celkweek en klinisch onderzoek. Van de aan carcinogenen blootgestelde konijnmodellen uit het begin van de twintigste eeuw tot de huidige generatie gehumaniseerde patient-derived xenograft (PDX)-systemen, zijn deze platforms geëvolueerd als reactie op de eisen van translationeel kankeronderzoek. Deze review onderzoekt kritisch de biologische principes, methodologische standaarden en translationele toepassingen van de belangrijkste xenograftplatforms die momenteel in gebruik zijn. Cell line-derived xenograft (CDX)-modellen blijven de meest gebruikte en kosteneffectieve modaliteit voor preklinische werkzaamheidstests, waarbij zij de reproduceerbaarheid, schaalbaarheid en toegankelijkheid bieden die hun rol in oncologische geneesmiddelenontwikkelingspijplijnen gedurende decennia hebben bestendigd. PDX-modellen zijn naar voren gekomen als het voorkeursplatform voor co-klinisch trialontwerp, de ontdekking van predictieve biomarkers en gepersonaliseerde oncologische toepassingen, doordat zij het genomische landschap, de intratumorale heterogeniteit en de histologische architectuur van de donortumor over opeenvolgende passages behouden. De engraftmentbiologie van PDX-systemen, inclusief de selectie van immuundeficiënte gastheerstammen, de implantatieplaats, de tumorbron en de passagebiologie, wordt besproken, samen met gehumaniseerde en autologe gehumaniseerde configuraties die het platform uitbreiden naar de evaluatie van immuuncheckpointremmers, bispecifieke T-cel-engagers en chimere antigeenreceptor T (CAR-T)-celtherapie. Deze review behandelt de vertaling van preklinisch naar klinisch onderzoek als functie van immunologische divergentie, onvolledige recapitulatie van de tumoromgeving en standaardisatie. Formele kaders, waaronder de PDX Model Minimal Information (PDX-MI) standaard en de Minimal Information for Standardization of Humanized Mice (MISHUM), worden onderzocht naast de wereldwijde biobankinfrastructuur en opkomende AI-gestuurde translationele modelleringsbenaderingen.
Inleiding
Kanker blijft wereldwijd een van de belangrijkste doodsoorzaken, met naar schatting 28,4 miljoen nieuwe diagnoses per jaar tegen 20401. Ondanks opmerkelijke therapeutische vooruitgang, waaronder moleculair gerichte middelen, immuuncheckpointremmers, chimerische antigeenreceptor T (CAR-T) celtherapieën en antilichaam-drugconjugaten, ontwikkelt de meerderheid van de patiënten met gevorderde maligniteiten drugresistentie of reageert niet op de initiële behandeling, en de totale vijfjaarsoverlevingspercentages voor veel solide tumoren blijven onbevredigend2. De ontwikkeling van kankermedicijnen wordt nog steeds gekenmerkt door een moeilijke translationele bottleneck. Een groot deel van de oncologische middelen met veelbelovende preklinische activiteit faalt tijdens klinisch onderzoek, wat aangeeft dat veel experimentele systemen de biologische determinanten van de patiëntrespons nog steeds niet adequaat vatten3,4. De behoefte aan in vivo preklinische systemen die de genomische, histopathologische en farmacologische eigenschappen van menselijke kanker getrouw nabootsen, is goed vastgesteld. Xenograftmodellen zijn centraal gebleven in dit probleem en in de potentiële oplossing daarvan, omdat ze de meest gevestigde in vivo brug vormen tussen celcultuur en de kliniek. Xenograftmodellen worden gecreëerd door menselijk tumormateriaal te implanteren in een immunologisch permissieve gastheer, meestal een immunodeficiënte muis5. Twee hoofdvormen domineren het vakgebied: cellijn-afgeleide xenografts (CDX), die worden gegenereerd uit gevestigde kankercellijnen, en patiënt-afgeleide xenografts (PDX), die worden gegenereerd door directe transplantatie van vers chirurgisch of biopsiemateriaal zonder tussenliggende langdurige kweekstap6,7. Orthotope, gedissemeerde, subrenale kapsel-, organoïde-afgeleide en gehumaniseerde varianten breiden dit kader verder uit door de implantatieplaats, het bronmateriaal of de immuunstatus van de gastheer te wijzigen8,9,10.
Menselijke maligniteiten zijn dynamische systemen die worden gevormd door somatische mutaties, epigenetische herprogrammering, intratumorale heterogeniteit en voortdurende co-evolutionaire interacties tussen neoplastische en stromale celpopulaties6,11. Hoewel kankercellijnen historisch gezien als minder effectieve voorspellers van de klinische respons werden beschouwd3,4, is dit standpunt sindsdien herzien10,12,13. Hoewel cellijnen wel lijden onder genomische drift, het verlies van stromale en immuuncomponenten en divergentie van de ouderlijke tumorheterogeniteit, reflecteert een groot deel van hun schijnbare gebrek aan voorspellende waarde het studieontwerp (kleine panels, niet-overeenkomende histologieën en afwezigheid van moleculaire stratificatie) in plaats van een intrinsiek falen van het model14. PDX-modellen pakken de belangrijkste beperkingen van cellijnmodellen (genomische drift, verlies van heterogeniteit en afwezigheid van stroma) gedeeltelijk aan door verse tumorfragmenten van patiënten direct in immuundeficiënte muizen te transplanteren, waardoor de histologie van de donor, de genomische architectuur en aspecten van de stromale organisatie behouden blijven gedurende de eerste passages, waarbij orthotope, gedissemineerde, subrenale kapsel-, organoïde-afgeleide en gehumaniseerde varianten het kader uitbreiden naar implantatieplaats, bronmateriaal en immuunstatus van de gastheer10. PDX-trials op populatieniveau recapituleren klinische responsen op indicatieniveau12, en gematchte patiënt-PDX-paren vertonen ~87% concordantie met individuele patiëntuitkomsten, hoewel de specificiteit in die analyse 70% was13.
Het landschap van xenotransplantaties strekt zich verder uit tot gehumaniseerde platforms, waarbij PDX-tumoren worden gekweekt in gastheren die zijn gereconstitueerd met componenten van een menselijk immuunsysteem9, naast orthotope modellen op anatomisch cognate primaire locaties en metastatische varianten14. Tegelijkertijd richt deze review zich op murine xenograft-modellen; complementaire systemen zoals assays met het chorioallantoïce vlies (CAM) van kuikens15, zebravis-embryo xenotransplantaties16 en patiëntafgeleide organoïden17 kunnen orthogonale voordelen bieden op het gebied van snelheid, doorvoersnelheid en schaalbaarheid, waardoor ze een plek krijgen binnen geïntegreerde multi-platform preklinische workflows. De internationale PDX-biobankinginfrastructuur is het afgelopen decennium aanzienlijk uitgebreid18, en formele standaardiseringskaders - de PDX Model Minimal Information (PDX-MI) standaard19 en de Minimal Information for Standardization of Humanized Mice (MISHUM)20 - zijn vastgesteld; echter blijft de onvolledige adoptie in de gepubliceerde literatuur een structurele barrière voor klinische translatie. Formele standaardiseringskaders zijn vastgesteld om de rapportage van klinische annotatie, engraftment-methodologie, passagegeschiedenis, kwaliteitsborging en parameters voor immuunreconstitutie te harmoniseren. Ondanks deze vooruitgang is geen enkel xenograft-platform voldoende voor elke translationele vraag. PDX-modellen zijn inherent traag, arbeidsintensief en onderhevig aan variabele take rates, terwijl gehumaniseerde xenograft-systemen, hoewel ze het immuundeficiëntie-tekort van conventionele PDX-gastheren gedeeltelijk aanpakken, extra variabiliteit introduceren door onvolledige immuunreconstitutie9, inter-donor heterogeniteit21 en graft-versus-host beperkingen22. Bovendien blijft standaardisering ongelijkmatig: protocollen voor modelvestiging, conventies voor passagenummering, authenticatiemethoden, kwantificering van tumorgroei, immuunmonitoring, definitie van eindpunten en de algemene rapportagekwaliteit variëren aanzienlijk tussen instellingen en publicaties23. Deze review onderzoekt xenograft-modellen via de dubbele lens van standaardisering en praktische modelselectie. Door CDX te positioneren als het essentiële vroege in vivo werkpaard en PDX als het platform met een hogere getrouwheid maar een hogere resource-intensiteit, synthetiseren we het huidige bewijs over modeltaxonomie, biologie van de gastheerstam, determinanten van engraftment, biobanking, genomische stabiliteit, kwantitatief onderzoeksontwerp en rapportagekaders, en contextualiseren we xenograft-systemen naast syngene modellen, organoïden, genetisch gemodificeerde muismodellen (GEMM) en snelle alternatieve assays. Het centrale argument is dat standaardisering niet moet worden opgevat als een poging om studies te consolideren in één enkele modelklasse, maar eerder als een kader dat definieert hoe elk platform wordt gegenereerd, gevalideerd, gerapporteerd en rationeel wordt gepositioneerd binnen een geïntegreerde preklinische workflow (Figuur 1).
Review en perspectief
Historische ontwikkeling en taxonomie
De demonstratie van carcinogeen-geïnduceerde huidkanker bij konijnen door Yamagiwa en Ichikawa in 1915 legde het concept van het experimentele tumormodel vast24. Syngene modellen ontstonden halverwege de twintigste eeuw met fundamentele lijnen, zoals Lewis-longcarcinoom, 4T1-mammacarcinoom, CT26-colorectaal carcinoom en B16-melanoom, die hun nut behouden in het huidige tijdperk van de immuno-oncologie25. De ontdekking van de athymische naakte muis door Flanagan in 1966 leverde de eerste immuungecompromitteerde gastheer op die in staat was xenogene weefsels te tolereren26, waardoor Rygaard en Povlsen in 1969 de eerste succesvolle transplantatie van een menselijke colorectale tumor konden realiseren27. De daaropvolgende ontwikkeling van stammen via SCID-, NOD/SCID- en IL-2-receptor common gamma chain (Il2rg)-null achtergronden elimineerde stapsgewijs de barrières van T-cellen, B-cellen en NK-cellen28, wat leidde tot de hedendaagse taxonomie: CDX, PDX, orthotope en gedissemineerde varianten, organoïde-afgeleide xenografts en gehumaniseerde xenografts6.
Het NCI-60-panel, aan het eind van de jaren 80 opgezet als een in vitro screening van 60 menselijke kankercellijnen uit negen weefseltypen, institutionaliseerde de systematische evaluatie van geneesmiddelen en vormde gedurende verschillende decennia de basis voor preklinische farmacologie op basis van cellijnen. Hierbij werden hit-verbindingen verder onderzocht in subcutane CDX-studies in athymische naakte muizen, waarbij gestandaardiseerde eindpunten zoals %T/C (percentage van het behandelde ten opzichte van het controle-tumorvolume), vertraging van de tumorgroei en geneesmiddelgerelateerde sterfgevallen werden gebruikt om vergelijkingen tussen studies mogelijk te maken29. CDX-modellen blijven het meest gebruikte en kosteneffectieve platform voor preklinisch efficacietesten; subcutane CDX-studies leveren resultaten op binnen 5–7 weken (Figuur 1) en spelen een centrale rol in de workflow van geneesmiddelenontwikkeling voor dosisoptimalisatie, farmacokinetische/farmacodynamische (PK/PD) karakterisering, kwantificering van de remming van tumorgroei (TGI) en beoordeling van overlevings-eindpunten (Figuur 2).
Vanuit een praktisch standpunt wordt de taxonomie van xenotransplantatiemodellen gedefinieerd door drie variabelen: de bron van de tumor, de implantatieplaats en de achtergrond van de gastheer. CDX-modellen rusten op gevestigde kankercellijnen met een stabiele levering en uitgebreide moleculaire en farmacologische annotaties via bronnen zoals de Cancer Cell Line Encyclopedia30. PDX-modellen maken gebruik van vers getransplanteerde tumorfragmenten van patiënten om de histologie, genomische architectuur en intratumorale heterogeniteit van de donor te behouden, hoewel het menselijke stroma geleidelijk wordt vervangen door muisstrooma bij seriële passaging10. De implantatieplaats bepaalt de biologische context: subcutane transplantatie geeft prioriteit aan technische eenvoud, reproduceerbaarheid en seriële metingen met een schuifmaat; orthotopische implantatie herstelt de orgaanspecifieke micro-omgeving en ondersteunt klinisch relevante patronen van spontane metastase; intravasculaire injectie (staartvene, intracardiaal, intrasplenisch) genereert experimentele metastasemodellen die latere stappen van de metastatische cascade onderzoeken, zoals extravasatie en kolonisatie14; en implantatie onder het nierkapsel maakt gebruik van een sterk gevasculariseerde plek die de aanslagpercentages voor tumors die moeilijk te transplanteren zijn, aanzienlijk verbetert31.
CDX en PDX: Complementaire rollen in de preklinische oncologie
Toenemend bewijs wees erop dat CDX-modellen een beperkt vermogen hadden om de klinische drugrespons te voorspellen, wat leidde tot een herwaardering van de preklinische oncologiemethodologie. Gevestigde kankercellijnen, die onbeperkt in kunstmatige culturen worden onderhouden, ondergaan progressieve clonale selectie, transcriptionele divergentie en verlies van de stromale en immuuncontext ten opzichte van de primaire tumoren waaruit ze zijn afgeleid. PDX-modellen behouden de histologie van de donor, de genomische architectuur en de intratumorale heterogeniteit over opeenvolgende passages10. In 2006 leverde een PDX-platform voor pancreaskanker de eerste demonstratie van biomarker-gestuurde voorspelling van de drugrespons32. In 2011 stelde het 'xenopatient'-platform 85 moleculair geannoteerde colorectale PDX-modellen samen, recapituleerde klinische cetuximab-responspatronen en identificeerde HER2-amplificatie als een targeteerbaar resistentiemechanisme - wat vervolgens werd gevalideerd in de HERACLES-trials33,34. Een baanbrekende studie uit 2015 paste een 1 × 1 × 1 PDX-klinisch trial (PCT) ontwerp toe op ~1.000 modellen en 62 behandelingsregimes, waarbij genotype-responsassociaties werden gereproduceerd en nieuwe resistentiemechanismen werden genomineerd, waarmee farmacologie op PDX-schaal werd gevestigd als een geloofwaardige brug naar het ontwerp van klinische trials12.
Ondanks deze vorderingen blijven CDX-modellen een gouden standaard voor vroege preklinische in vivo evaluatie van kandidaat-therapeutica, omdat ze snel, experimenteel zuiver en kostenefficiënt zijn: geauthenticeerde cellijnen kunnen genetisch worden gemanipuleerd, op grote schaal worden uitgebreid en worden geïmplanteerd in grote gematchte cohorten met relatief weinig biologische ruis, wat interpreteerbare resultaten voor werkzaamheid, farmacodynamiek en tolerantie mogelijk maakt op tijdlijnen die onpraktisch zijn voor PDX- of gehumaniseerde systemen. Canonieke lijnen zoals HCT116, A549 en U8735 zijn verankerd in decennia aan mechanistische literatuur en openbare omics-bronnen, en orthotopische of gedissemineerde CDX-varianten breiden hun nut uit naar weefseltropisme, metastatische kolonisatie en site-specifieke therapie zonder de operationele voordelen op te offeren10. Voor hypothese-gestuurde vragen gericht op target-afhankelijkheid, optimalisatie van het dosisschema, comparatieve werkzaamheid of bewijs van het mechanisme, blijft CDX het juiste eerste in vivo platform. De erkende beperkingen, waaronder clonale drift, de afwezigheid van menselijk stroma en immuuncompartimenten, en de beperkte voorspellende waarde op populatieniveau, definiëren het juiste gebruik ervan als een platform voor snelle triage en mechanisme, in plaats van als een surrogaat voor klinische uitkomsten.
Vestiging van het PDX-model: Tumorsources, implantatie en engraftment-biologie
Leefbaar tumormateriaal wordt meestal verkregen via chirurgische resectie en ook via kernbiopsie, maligne effusies of mergaspiraten bij hematologische maligniteiten31. Radicale resectie levert grotere volumes van leefbaar, architecturaal intact weefsel op; biopsieën leveren desondanks voldoende materiaal op wanneer ze gericht zijn op metastatische of niet-resecteerbare ziekten31,36. Weefsel moet worden getransporteerd in een koud gebufferd medium en binnen ~24 u worden verwerkt; warme ischemie die 2 u overschrijdt en ex vivo intervallen van meer dan 8–10 u verminderen de efficiëntie van de transplantatie geleidelijk. Goedkeuring door de institutionele toetsingscommissie en schriftelijke geïnformeerde toestemming zijn verplicht.
Tumormateriaal wordt verwerkt tot fragmenten van 1–3 mm3, waarbij de architectuur van de extracellulaire matrix en de ruimtelijke heterogeniteit behouden blijven, of gedissocieerd tot enkelcel-suspensies voor sortering en dosisgenormaliseerde inoculatie. Co-implantatie van Matrigel wordt vaak gebruikt om vroege vascularisatie te ondersteunen; het effect hiervan is variabel en dient te worden vermeld, aangezien het de micro-omgevingscontext beïnvloedt31. Hormoonsuppletie, estradiolpellets voor ER-positieve borsttumoren en dihydrotestosteron voor prostaattumoren, verbetert de transplantatie van hormoonafhankelijke maligniteiten. Subcutane implantatie in de dorsale flank maakt monitoring met een schuifmaat en operationele eenvoud mogelijk; orthotopische implantatie herstelt de orgaanspecifieke micro-omgeving; en implantatie onder het nierkapsel maximaliseert de percentages van succesvolle transplantatie voor moeilijk te transplanteren tumortypen, waaronder niet-kleincellig longkanker (NSCLC) en prostaatkanker31.
Engraftment is sterk afhankelijk van de tumor. Agressieve, slecht gedifferentieerde, behandelingresistente of metastatische tumoren engraften gemakkelijker dan indolente of goed gedifferentieerde tumoren; triple-negatieve borstkankers, pancreatische ductaal adenocarcinomen, hooggradige sereuze eierstokkankers en acute leukemieën presteren consistent beter dan luminale A borsttumoren en andere entiteiten met een lage take-rate, en een succesvolle engraftment zelf voorspelt een slechte prognose voor de patiënt bij triple-negatieve borstkanker en pancreatobiliaire maligniteiten10. De gastheerstam is een tweede belangrijke determinant: sterk immuundeficiënte stammen zoals NSG en NOG hebben naakte en SCID-muizen vervangen voor uitdagende of hematologische gevallen vanwege hun bredere permissiviteit9.
Bij conventie wordt de initiële implantatie bij de patiënt aangeduid als F0 (of P0), waarbij opeenvolgende passages worden gelabeld als F1, F2, enzovoort. De groeikinetiek stabiliseert doorgaans na de eerste passages, en de meeste programma's reserveren formele farmacologie voor F2- of F3-materiaal om inter-muisvariabiliteit te verminderen, hoewel er geen universele drempelwaarde bestaat; de meeste programma's definiëren een vroege passage als F2–F4, waarbij materiaal voorbij F5 een toenemend risico op subklonale uitgroei en transcriptionele drift met zich meebrengt op een snelheid die afhankelijk is van het tumortype. Omdat het passagenummer zowel de reproduceerbaarheid als de biologische drift beïnvloedt, moeten de passagegeschiedenis, de gastststam, de implantatieplaats en de herkomst voor elke studie worden vastgelegd in overeenstemming met de PDX-MI-rapportagestandaard19.
Immunodeficiënte gastheerstammen
Athymische naaktmuizen (Foxn1nu) missen rijpe T-cellen, maar behouden B-cellen, NK-cellen en aangeboren immuniteit. CB-17 scid-muizen, die een loss-of-function-mutatie in Prkdc dragen, missen T- en B-cellen door een defecte V(D)J-recombinatie, maar behouden NK-cellen en ontwikkelen naarmate ze ouder worden "lekkende" lymfocyten9. De scid-mutatie op de NOD/ShiLtJ-achtergrond (NOD/SCID) voegde defecten in de aangeboren immuniteit toe, waaronder complementdeficiëntie, een aangetaste functie van macrofagen en dendritische cellen en een verminderde NK-activiteit. De toevoeging van een null-mutatie in de gemeenschappelijke gamma-keten van de IL-2-receptor (Il2rg), die vereist is voor signalering door IL-2, IL-4, IL-7, IL-9, IL-15 en IL-21, elimineert functionele NK-cellen en schakelt de resterende aangeboren immuniteit uit, wat resulteert in NSG (NOD.Cg-Prkdcscid Il2rgtm1wjI/SzJ) en NOG (NODShi.Cg-Prkdcscid Il2rgtm1sug); NSG draagt een volledige Il2rg-knockout, terwijl NOG een getrunqueerde receptor tot expressie brengt die wel bindt maar niet kan signaleren. NSG en NOG ondersteunen de transplantatie van solide en hematologische maligniteiten en zijn de standaardgastheren voor PDX-werk. De NRG-stam (NOD.Cg-Rag1tm1Mom Il2rgtm1wjI) vervangt Prkdc door een Rag1-knockout, waardoor de competentie voor DNA-herstel behouden blijft. De BRG-stam (BALB/c-Rag2null Il2rgnull) biedt een stralingstolerant alternatief op een BALB/c-achtergrond dat het NOD-specifieke Sirpa-allel vermijdt. De SRG-rat (Sprague-Dawley Rag2/Il2rg double knockout) ondersteunt cellijnen en PDX'en die slecht groeien in NSG, waaronder VCaP-prostaatkanker met een take-rate van >90%, en maakt seriële bloed- en weefselbemonstering, orthotopische chirurgie en fysiologisch relevante farmacokinetiek mogelijk37.
Gehumaniseerde xenograftsystemen reconstitueren ernstig immuundeficiënte muizen met menselijke immuuncomponenten vóór of gelijktijdig met de tumor transplantatie38. De drie belangrijkste formaten zijn hu-PBMC (injectie van mononucleaire cellen uit perifeer bloed van volwassenen), hu-CD34 (intraveneuze menselijke CD34⁺ hematopoëtische stamcellen (HSCs) na sublethale bestraling of busulfan-conditionering) en BLT (co-implantatie van foetale lever en thymus met CD34⁺ cellen, wat resulteert in de meest volledige lymfoïde ontwikkeling). Deze modellen maken de evaluatie van immuuncheckpointremmers, bispecifieke antilichamen, cellulaire therapieën en immuun-gemedieerde resistentiemechanismen mogelijk38. Autologe of HLA-gematchte ontwerpen koppelen het tumor- en immuuncompartiment van dezelfde donor. De efficiëntie van de reconstitutie is afhankelijk van de donorbron, de gaststamm, het conditioneringsregime en de studieduur; myeloïde, stromale en lymfoïde compartimenten zijn doorgaans onvolledig of uit balans: hu-PBMC-modellen hebben een tekort aan NK-cellen, B-cellen en myeloïde lijnen ondanks een robuuste T-cel transplantatie; hu-CD34-modellen ondersteunen multilineaire output maar ondervertegenwoordigen conventionele dendritische cellen en weefselmacrofagen; en BLT-modellen bereiken een superieure thymische T-cel educatie maar blijven suboptimaal voor myeloïde reconstitutie. hu-PBMC-muizen bereiken een snelle T-cel reconstitutie, maar ontwikkelen binnen drie tot 6 weken xenogene graft-versus-hostziekte (GvHD) door menselijke T-celherkenning van muis-MHC; NSG-MHC-I/II-null varianten verzachten dit gedeeltelijk22. hu-CD34-muizen maken langere studies mogelijk, maar vereisen een uitgebreidere reconstitutie en reproduceren de menselijke myeloïde, NK- of stromale biologie niet volledig.
Orthotope en metastase-modellen
Subcutane xenografts zijn weliswaar het standaard preclinical platform van eerste keuze, maar plaatsen humaan tumorweefsel in een biologische context die afwijkt van de natuurlijke micro-omgeving van het orgaan. De samenstelling van de extracellulaire matrix, de vasculaire architectuur, de zuurstofspanning, de stromale populaties en de paracriene signalering van de dorsale subcutane ruimte verschillen van die van de borst, pancreas, het peritoneum, het colon of de long10. Orthotope implantatie herstelt de orgaanspecifieke micro-omgeving en ondersteunt doorgaans een verbeterde vascularisatie en spontane metastasering die de natuurlijke progressie van kanker nauwkeuriger nabootsen, ten koste van een grotere chirurgische complexiteit en de noodzaak van monitoring op basis van beeldvorming39.
Orthotope PDX-technieken zijn uitgebreid naar diverse tumortypes. Borstkanker-PDX wordt gevestigd in het vetweefsel van de borst, wat spontane long- en lymfekliermetastasen ondersteunt40. Colorectale kanker-PDX, geïmplanteerd in de wand van het caecum of de colon, recapituleert lokale invasie en levermetastasen39. Ovariumkanker-PDX, intraperitoneaal toegediend, reproduceert de peritoneale verspreiding die kenmerkend is voor hooggradige sereuze ziekten41. Pancreatisch ductaal adenocarcinoom-PDX, geïmplanteerd in de pancreas, reproduceert de desmoplastische stromale reactie en vroege lokale invasie32. Er worden twee hoofdstrategieën voor het modelleren van metastasen gebruikt: experimentele metastasemodellen, waarbij tumorcellen intravasculair worden toegediend om latere stappen van de metastatische cascade te beoordelen, zoals extravasatie en kolonisatie; en spontane metastasemodellen, waarbij orthotope primaire tumoren zich via de volledige cascade verspreiden14.
Standaardisatie, authenticatie en onderzoeksopzet
Vier kaders voor rapportage en onderzoeksopzet definiëren xenograft-experimenten. PDX-MI specificeert minimale metadata voor patiëntafgeleide modellen, waaronder informatie over de donor, de tumorbron, de gastheerstam, de implantatieplaats, het aantal passages, de engraftment-rate en histologische en moleculaire karakterisering; authenticatie via short tandem repeat (STR) is opgenomen onder kwaliteitscontrole van het model om de herkomst te bevestigen en kruiscontaminatie te detecteren19. MISHUM breidt analoge vereisten uit naar gehumaniseerde systemen, waarbij de bron van menselijke hematopoëtische stamcellen of PBMC's, het conditioneringsregime, de gastheerstam, de reconstitutie-efficiëntie geverifieerd door flowcytometrie en de monitoring van GvHD worden gedekt20. OBSERVE (Oncology Best-practices: Signs, Endpoints and Refinements for In Vivo Experiments), een consensus van EurOPDX/INFRAFRONTIER uit 2024, biedt richtlijnen voor verfijning en welzijn specifiek voor knaagdiermodellen voor kanker, ter aanvulling op de bredere PREPARE- en ARRIVE 2.0-kaders23,42. De consensusaanbevelingen van NCI PDXNet uit 2024 behandelen het onderzoeksontwerp, de analyse van tumorgroei en de categorisering van de respons voor PDX-farmacologie-experimenten, en bieden een openbare suite van analytische instrumenten43.
Deze kaders zijn niet volledig geharmoniseerd, en een moderne xenotransplantatiestudie moet mogelijk gelijktijdig voldoen aan de vereisten van de PDX-MI-, MISHUM-, OBSERVE- en PDXNet-aanbevelingen. In de praktijk worden het aantal passages, de formule voor tumormeting, de bron van de gastheer, de authenticatiemethode en de vooraf vastgestelde analytische strategie vaak weggelaten43. Een uniform rapportageschema dat CDX, PDX en gehumaniseerde systemen omvat, blijft een onvervulde behoefte. Publiek toegankelijke PDX-repository's omvatten de NCI Patient-Derived Models Repository (PDMR), het EurOPDX Data Portal en PDX Finder, die gezamenlijk enkele duizenden modellen catalogiseren met bijbehorende genomische, histologische en farmacologische gegevens om de identificatie en acquisitie van modellen te ondersteunen18. CDX-studies vereisen routinematige STR-profilering en controle op contaminatie, terwijl PDX-studies een koppeling met de donorcasus vereisen, moleculaire bevestiging van driver-kenmerken waar mogelijk, en documentatie van menselijke versus muize cellulariteit over verschillende passages19. De schatting van het tumorvolume blijft inconsistent tussen studies, waarbij verschillende formules worden toegepast zonder expliciete vermelding, wat de schattingen van hetbehandelingseffect verandert en de vergelijking tussen studies bemoeilijkt; standaardisatie van groeimetrieken, responsdrempels, censureringsregels en visualisatieformaten is daarom net zo belangrijk als de standaardisatie van transplantatiemethoden43.
Genomische getrouwheid, clonale evolutie en translationele interpretatie
PDX behoudt drivermutaties en kopie-aantallandschappen in vroege passages getrouwer dan CDX, wat het gebruik ervan ondersteunt voor biomarkerontwikkeling, resistentiestudies en co-klinische modellering44. Er treden echter muisspecifieke tumorevolutie, stromale vervanging en epigenetische herprogrammering op tijdens het passageren, en sommige schijnbare inconsistenties weerspiegelen subklonale bemonstering van ruimtelijk heterogene tumoren in plaats van model-geïnduceerde drift45. Vroege passages vertonen een sterkere biologische correspondentie dan uitgebreid gepassageerd materiaal, hoewel beide worden gevormd door selectiedruk van de implantatieplaats, de immuniteit van de gastheer en eerdere behandelingen45. Hieruit volgen twee praktische principes: PDX-modellen moeten longitudinaal worden gekarakteriseerd in plaats van als statisch te worden beschouwd, en de integratie van sequencing, histopathologie, transcriptionele profilering en behandelingsrespons wordt aanbevolen wanneer de modelselectie belangrijke downstreamgevolgen heeft44.
Gehumaniseerde muismodellen en immuno-oncologische toepassingen
Gehumaniseerde systemen die zijn gereconstitueerd met menselijke PBMC's, CD34⁺ HSC's of BLT-weefsel adresseren het onvermogen van conventionele PDX-gastheren om een intact menselijk immuunmicro milieu te modelleren. hu-PBMC-modellen bereiken een snelle T-celreconstitutie, maar worden beperkt door xenogene GvHD binnen drie tot zes weken; hu-CD34-modellen vereisen 8–16 weken voor multilineage-reconstitutie, maar ondersteunen langere studies9. De introductie van menselijke cytokine-transgenen heeft de reconstitutie van specifieke immuunlijnen verder verbeterd. NSG-SGM3-muizen (transgeen voor menselijk IL-3, GM-CSF en SCF) ondersteunen de ontwikkeling van myeloïde cellen en mastcellen46. MISTRG-muizen (gehumaniseerd voor M-CSF, IL-3, GM-CSF, SIRPα en trombopoëtine) en MISTRG6-muizen (aanvullend gehumaniseerd voor IL-6) op een Rag2⁻/⁻ Il2rg⁻/⁻ achtergrond, produceren de meest uitgebreide menselijke myeloïde, NK- en weefselmacrofaag-reconstitutie die momenteel beschikbaar is en ondersteunen de engraftment van volwassen uit het beenmerg afgeleide hematopoëtische stam- en progenitorcellen die andere stammen niet kunnen accommoderen47. NOG-EXL-muizen (transgeen voor menselijk IL-3 en GM-CSF op de NOG-achtergrond) ondersteunen myeloïde en mastcelreconstitutie bij lagere cytokineniveaus dan NSG-SGM3, wat resulteert in een verbeterde overleving op lange termijn en een minder ernstig macrofaagactivatiesyndroom, waardoor ze beter geschikt zijn voor uitgebreide humanisatie- en tumorstudies. Gehumaniseerde muizen die zijn geengraft met menselijke T-cellen maken het mogelijk om het cytokinerelease-syndroom (CRS) te modelleren, wat preklinische karakterisering van het veiligheidsprofiel van bispecifieke T-cel-engagers, CD3-targeterende antilichamen en gerelateerde T-cel-activerende biologics mogelijk maakt. Geen enkele stam is universeel superieur; de selectie wordt geleid door de immuunlijn van belang en de studieduur.
De configuratie met de hoogste getrouwheid is de autologe gehumaniseerde PDX, waarbij op de patiënt afgestemde hematopoëtische cellen en tumorweefsel samen worden geënt, waardoor MHC-mismatch tussen de immuun- en tumorcompartimenten wordt geëlimineerd47. Chiorazzi en collega's toonden in 2023 aan dat autologe MISTRG6 PDX-modellen menselijke aangeboren en adaptieve immuunpopulaties genereren die de tumormicro-omgeving infiltreren, activatie- en uitputtingsprogramma's in CD8⁺ T-cellen recapituleren en een VEGF-A-gedreven pro-tumor myeloïde signatuur produceren waarvan inhibitie de verhoogde tumorgroei opheft, wat deze configuratie valideert als platform voor de evaluatie van immunotherapie47. Phoon en collega's breidden deze aanpak uit naar melanoom en toonden aan dat autologe PBMC-gehumaniseerde PDX-modellen de inter-patiëntvariabiliteit in de respons op checkpoint-blokkade en gemanipuleerde IL-2 cytokinen vastleggen48,49. Een parallelle autologe aanpak, de adoptieve transfer van ex vivo uitgebreide patiënt-afgeleide tumor-infiltrerende lymfocyten (TILs) naar muizen met overeenkomstige PDX-tumoren, is gebruikt om de effectiviteit van TIL-therapie bij melanoom en andere solide tumoren te modelleren50. De interpretatie van immunotherapiestudies in gehumaniseerde systemen vereist niettemin voorzichtigheid: verschillende immuun-checkpoint-antilichamen (bijv. anti-CTLA4, anti-PD1) hebben soortspecifieke kruisreactiviteit, de functie van dendritische cellen en antigeenpresentatie blijven onvolledig in de meeste gehumaniseerde stammen, en structuren zoals tertiaire lymfoïde organen en volledig functionele kiemcentra worden zelden gereconstitueerd51.
CAR-T-celtherapie en xenograftmodellen
CAR-T-celtherapie heeft meerdere reglementaire goedkeuringen voor hematologische maligniteiten, en xenograft-evaluatie in immuundeficiënte muizen met CDX- of PDX-tumoren is het standaard preklinische platform voor humane CAR-T-producten voorafgaand aan klinische translatie52. Het immunologische tekort van NSG-klasse gastheren sluit macrofaagactivatie, cross-presentatie door dendritische cellen en regulatoire T-cel-gemedieerde suppressie uit van het experimentele systeem, en murine xenografts voorspelden de cytokinedreven systemische toxiciteiten die later bij patiënten werden waargenomen niet52. Een systematische review en meta-analyse uit 2025 van 422 klinische trials en 3.157 preklinische studies rapporteerde dat preklinische efficiëntiesignalen in CAR-T-xenograftmodellen grotendeels homogeen en antigeen-onafhankelijk zijn en geen onderscheid maken tussen CAR-constructen die vervolgens slagen of falen in klinische trials53. Fløe en collega's documenteerden in 2025 dat soortspecifieke verschillen in cytokine-signalering, antigeendichtheid, het T-celreceptor-repertoire en tumor-immuun-interactie de translationele capaciteit van CAR-T-xenograftgegevens beperken, en dat syngene modellen worden aangewend in ~4% van de gepubliceerde preklinische CAR-T-studies52,53. Cytokine-release-syndroom (CRS) en immune effector cell-associated neurotoxicity syndrome (ICANS) worden niet gereproduceerd in standaard NSG-xenografts. Mechanistische studies in NSG-SGM3-gastheren gaven aan dat CRS primair wordt gedreven door monocyt-afgeleide IL-1 en IL-6, waarbij IL-1 en IL-6 verschillend vereist zijn voor CRS versus neurotoxiciteit. Daarnaast vermindert GM-CSF-neutralisatie CRS en neuro-inflammatie terwijl de antitumoractiviteit van CAR-T behouden blijft. Deze pathways worden gevangen in cytokine-transgene en autologe gehumaniseerde configuraties in plaats van in conventionele NSG-gebaseerde xenografts. Syngene murine CAR-T-modellen bieden een complementair platform dat evaluatie van CAR-T-interacties met een intact immuunsysteem van de gastheer mogelijk maakt, ten koste van de afhankelijkheid van murine in plaats van humane doelbiologie. Xenograft-gebaseerde evaluatie ondersteunde de klinische translatie van CD19-gerichte CAR-T-therapie, waarbij activiteit tegen B-ALL- en B-NHL-modellen in NSG-gastheren overeenkwam met duurzame klinische responsen54.
Geneesmiddelenontwikkeling, biomarkerontdekking en AI-gestuurde translatie
PDX-modellen zijn erop gericht om klinische drugresponsen met een grotere getrouwheid te voorspellen dan CDX- of GEMM-modellen. De Novartis PDX-klinische trial (PCT) uit 2015 van Gao en collega's paste een 1 × 1 × 1 ontwerp toe op ~1.000 PDX-modellen, 62 behandelregimes en zes indicaties, en identificeerde genotype-responsassociaties samen met gevestigde en nieuwe resistentiemechanismen12. De uitbreiding van het 1 × 1 × 1 concept naar het niveau van de individuele patiënt wordt beperkt door een establisheringstijdlijn van 3–6 maanden, waardoor PDX-gestuurde beslissingen doorgaans in de tweede- of derdelijnsbehandeling vallen10. PDX-studies hebben bijgedragen aan gevalideerde klinische biomarkers, waaronder de KRAS-mutatie als voorspeller van anti-EGFR-resistentie bij colorectaal carcinoom, EGFR-activerende en T790M-mutaties voor de selectie van tyrosinekinase-remmers bij NSCLC, HER2-amplificatie bij borst- en maagkanker en platinaresistentie bij eierstokkanker10.
Grote PDX-datasets van medicijnrespons hebben machine learning-benaderingen voor het voorspellen van de medicijnrespons mogelijk gemaakt. Yang en collega's beschreven in 2025 TRANSPIRE-DRP, een deep-learning framework dat gebruikmaakt van ongesuperviseerde domeinadaptatie om transcriptomische PDX-data te vertalen naar responsvoorspellingen op patiëntniveau, geëvalueerd voor cetuximab, paclitaxel en gemcitabine55. Tosca en collega's publiceerden in 2024 een translationeel modelleringsframework dat PDX-tumorgroeisnelheden allometrisch schaalde om de verdubbelingstijd van het tumorvolume en de progressievrije overleving in onbehandelde patiëntenpopulaties te voorspellen bij elf solide kankertypes, waarbij 91% van de voorspelde medianen van de verdubbelingstijd van het tumorvolume binnen 1,5-voud van de klinische observaties lagen56. Er blijven onopgeloste uitdagingen bestaan: selectiebias in biobanken naar engraftbare tumoren, beperkte prospectieve klinische validatie en de afwezigheid van een gedefinieerd regulerend traject voor AI-afgeleid preklinisch bewijs33,55.
Xenograft-platformen beantwoorden verschillende translationele vragen in verschillende ontwikkelingsstadia in plaats van dat ze concurreren om één enkele rol. CDX-modellen blijven centraal voor vroeg mechanistisch onderzoek en high-throughput screening; PDX-modellen bieden de genomische getrouwheid en interpatiënt-heterogeniteit die nodig zijn voor biomarker-validatie en modellering van de klinische respons; gehumaniseerde en autologe gehumaniseerde configuraties adresseren immunotherapie-specifieke vragen waar conventionele xenografts dat niet kunnen; en organoïde-gebaseerde platformen vergroten de ex vivo throughput wanneer weefsel beperkt is; deze platformen ondersteunen gezamenlijk de preklinische evaluatie van nieuwe, gevestigde en alternatieve kankertherapieën57,58,59. AI- en machine learning-frameworks zoals TRANSPIRE-DRP en translationele PK/PD-modellen koppelen nu PDX-drugresponsdata aan responsvoorspellingen op patiëntniveau, maar hun klinische bruikbaarheid hangt af van de kwaliteit en standaardisatie van de onderliggende modelannotatie. De centrale onopgeloste kwesties zijn predictieve validiteit, reproduceerbaarheid van rapportage, representativiteit van biobanken en de regelgevende status van AI-afgeleid preklinisch bewijs. Vooruitgang zal minder afhangen van de introductie van nieuwe modelcategorieën dan van het gedisciplineerde gebruik van bestaande, ondersteund door geharmoniseerde metadata, longitudinale getrouwheidsbeoordeling en transparante cross-platform integratie.
Conclusies
Xenograftmodellen zijn geëvolueerd van eenvoudige subcutane implantaten van gevestigde cellijnen naar een veelzijdig experimenteel kader dat CDX- en PDX-modellen, orthotrope en metastaseringvarianten en gehumaniseerde immuun-gereconstitueerde systemen omvat, waaronder autologe configuraties. Deze evolutie is aangestuurd door de groeiende erkenning dat de getrouwheid aan de menselijke kankerbiologie, in termen van genomisch landschap, intratumorale heterogeniteit en de tumoromgeving, een bepalende factor is voor de preklinische voorspellende waarde.
CDX-modellen blijven centraal staan in de preklinische oncologie als het meest gebruikte en kostenefficiënte in vivo platform voor vroege fasen van geneesmiddelonderzoek, waarbij ze reproduceerbare, schaalbare gegevens leveren voor dosisoptimalisatie, PK/PD-karakterisering, beoordeling van tumorgroeiremming en evaluatie van overlevingsmetrieken. PDX-modellen bieden de getrouwheid die nodig is voor biomarkerontdekking, het ontwerp van co-klinische studies en farmacologische toepassingen die afhankelijk zijn van het behoud van genomische en histologische kenmerken van de donor. De hiërarchie van immuundeficiëntie - van nude en SCID via NSG, NOG, NRG en BRG, met de opkomende SRG-rat - weerspiegelt de progressieve verfijning van de toelaatbaarheid voor engraftment. Gehumaniseerde en autologe configuraties breiden deze platforms uit naar de evaluatie van immuuncheckpointremmers, bispecifieke antilichamen en CAR-T-celtherapie, hoewel immunologische beperkingen op soortniveau blijven bestaan.
Het verbeteren van de preklinische translatie vereist een rigoureus studieontwerp en gestandaardiseerde rapportage. De consensusaanbevelingen van PDX-MI, MISHUM, OBSERVE en het NCI PDXNet bieden de nodige rapportagekaders; de consistente toepassing door onderzoekers, tijdschriften en financierende instanties blijft de kritieke determinant voor de impact. De koers van het xenograft-onderzoek convergeert naar vier prioriteiten: gestandaardiseerde rapportage over alle platforms heen, een rationele selectie van het platform afgestemd op de translationele vraagstelling, voortdurende verfijning van de engineering van gehumaniseerde modellen, en AI-gestuurde translatiekaders die grootschalige PDX-datasets omzetten in klinisch bruikbare responsvoorspellingen.
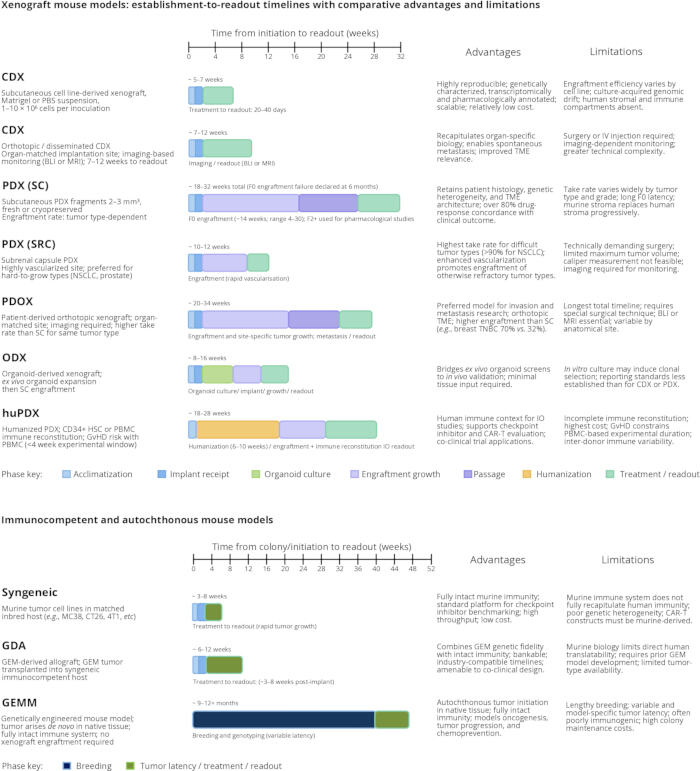
Figuur 1Xenograft-muismodellen: tijdlijnen van vestiging tot resultaatmeting met vergelijkende voordelen en beperkingenTijdlijnen van initiatie tot experimentele readout worden weergegeven voor de belangrijkste preklinische platforms die worden gebruikt bij de ontwikkeling van oncologische geneesmiddelen, gegroepeerd naar de immuunstatus van de gastheer. Het bovenste paneel omvat xenograftmodellen in immuundeficiënte gastheren: subcutane en orthotope of gedissemineerde cellijn-afgeleide xenografts (CDX), subcutane patiënt-afgeleide xenografts (PDX), subcapsula renale PDX (PDX-SRC), patiënt-afgeleide orthotope xenografts (PDOX), organoïd-afgeleide xenografts (ODX) en gehumaniseerde PDX (huPDX). Het onderste paneel omvat immunocompetente en autochtone platforms: syngene modellen, allografts afgeleid van genetisch gemodificeerde muismodellen (GDA) en genetisch gemodificeerde muismodellen (GEMM). Voor elk platform zijn de experimentele fasen kleurgecodeerd (acclimatisatie, ontvangst implantaat, organoïdcultuur, engraftment en groei, passage, humanisering en behandeling/readout; of fokken en tumorlatentie/behandeling/readout voor autochtone modellen), waarbij de geschatte totale duur in weken wordt aangegeven. Platformspecifieke voordelen en beperkingen zijn samengevat in het rechterpaneel. De tijdlijnen vertegenwoordigen standaardprocedures die zijn geïmplementeerd bij Altogen Labs en zijn consistent met gepubliceerde bereiken in het vakgebied (https://altogenlabs.com/xenograft-models); feitelijke durees variëren per tumortype, gastheerstam, studiedesign en engraftment-kinetiek. BLI, bioluminescentie-imaging; GvHD, graft-versus-host-ziekte; HSC, hematopoëtische stamcel; IO, immuno-oncologie; MRI, magnetic resonance imaging; NSCLC, niet-kleincellig longcarcinoom; PBMC, perifere bloed mononucleaire cel; SC, subcutaan; TME, tumormicro-omgeving; TNBC, triple-negatief borstkanker. Klik hier om een grotere versie van deze figuur te bekijken.
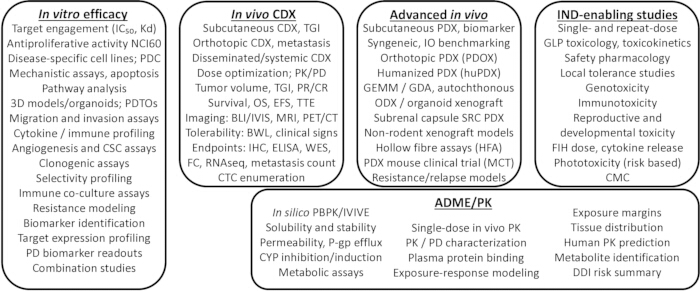
Figuur 2Geïntegreerde preklinische oncologie-workflow: van in vitro werkzaamheid via studies ter ondersteuning van een aanvraag voor een nieuw onderzoeksgeneesmiddel (Investigational New Drug, IND)Schematische weergave van de gestructureerde preklinische pijplijn voor geneesmiddelenontwikkeling, georganiseerd in vier opeenvolgende fasen. In vitro effectiviteit omvat target engagement (IC50, KD), antiproliferatieve activiteit in cellijnpanels, waaronder de NCI-60 en ziektespecifieke lijnen, patiëntafgeleide cellen (PDC), mechanistische en pathway-assays, driedimensionale modellen en patiëntafgeleide tumor-organoïden (PDTO), migratie- en invasie-assays, cytokine- en immuunprofilering, angiogenese- en kankerstamcel-assays, clonogene assays, selectiviteitsprofielanalyse, immuun co-cultuur-assays, resistentiemodellering, biomarker-identificatie, target-expressieprofilering, farmacodynamische biomarker-read-outs en combinatiestudies. In vivo CDX omvat subcutane, orthotope en gedissemineerde of systemische CDX voor dosisoptimalisatie, PK/PD-karakterisering, bepaling van het tumorvolume en TGI, classificatie van gedeeltelijke en volledige respons (PR/CR), survival-eindpunten (OS, EFS, TTE), multimodale beeldvorming (BLI/IVIS, MRI, PET/CT), tolerantie-indicatoren waaronder gewichtsverlies (BWL) en klinische symptomen, moleculaire eindpunten (IHC, ELISA, WES, flowcytometrie, RNA-seq, metastase-tellingen) en enumeratie van circulerende tumorcellen (CTC). Geavanceerd in vivo platformen omvatten subcutane en orthotope PDX, subrenale kapsel (SRC) PDX, gehumaniseerde PDX, syngene modellen voor immuno-oncologische benchmarking, GEMM en GDA, ODX, xenograftmodellen in niet-knaagdieren, hollow-fiber assays (HFA), klinische proeven in PDX-muizen (MCT) en resistentie-/recidivemodellen. IND-ondersteunende studies omvatten GLP-toxicologie bij enkelvoudige en herhaalde dosering, toxicokinetiek, veiligheidsfarmacologie, lokale tolerantie, genotoxiciteit, immunotoxiciteit, reproductieve en ontwikkelingstoxiciteit, projectie van de first-in-human (FIH) dosis, evaluatie van cytokinerespons en fototoxiciteitsbeoordeling op basis van risico. Parallelle chemie-, productie- en controle- (CMC) en absorptie, distributie, metabolisme en excretie/farmacokinetische (ADME/PK) karakterisering omvatten in silico PBPK- en IVIVE-modellering, oplosbaarheid en stabiliteit, permeabiliteit en P-glycoproteïne (P-gp) efflux, cytochrome P450 (CYP) inhibitie en inductie, en metabole assays, in vivo PK, plasmaproteïnebinding, blootstellings-responsthese, weefseldistributie, voorspelling van humane PK, identificatie van metabolieten en risicobeoordeling van geneesmiddelinteracties (DDI). Klik hier om een grotere versie van deze figuur te bekijken.
Openbaarmakingen
De auteur is in dienst bij Altogen Labs (Austin, TX, USA), een contractonderzoeksorganisatie die preklinische oncologische onderzoeksdiensten verleent. Figuur 1 en Figuur 2 zijn originele door de auteur gegenereerde schema's. De figuren bevatten tijdlijnen en workflows die zijn afgeleid van de standaardwerkwijzen van Altogen Labs. Er is geen belangenverstrengeling gemeld.
Referenties
- Sung H, Ferlay J, Siegel RL, et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2021;71(3):209-249.
- Islami F, Wiese D, Schafer EJ, Sung H, Jemal A. Stage-specific cancer survival in Black and White persons by urbanicity of county of residence, United States, 2015-2021. Cancer. 2025:e70073.
- Johnson JI, Decker S, Zaharevitz D, et al. Relationships between drug activity in NCI preclinical in vitro and in vivo models and early clinical trials. Br J Cancer. 2001;84(10):1424-1431.
- Voskoglou-Nomikos T, Pater JL, Seymour L. Clinical predictive value of the in vitro cell line, human xenograft, and mouse allograft preclinical cancer models. Clin Cancer Res. 2003;9(11):4227-4239.
- Jung J. Human tumor xenograft models for preclinical assessment of anticancer drug development. Toxicol Res. 2014;30(1):1-5.
- Liu Y, Wu W, Cai C, et al. Patient-derived xenograft models in cancer therapy: technologies and applications. Signal Transduct Target Ther. 2023;8:160.
- Okada S, Vaeteewoottacharn K, Kariya R. Application of highly immunocompromised mice for the establishment of patient-derived xenograft (PDX) models. Cells. 2019;8(8):889.
- Blanchard Z, Brown EA, Ghazaryan A, et al. PDX models for functional precision oncology and discovery science. Nat Rev Cancer. 2025;25(3):153-166.
- Shultz LD, Brehm MA, Garcia-Martinez JV, et al. Humanized mice for immune system investigation: progress, promise and challenges. Nat Rev Immunol. 2012;12(11):786-798.
- Hidalgo M, Amant F, Biankin AV, et al. Patient-derived xenograft models: an emerging platform for translational cancer research. Cancer Discov. 2014;4(9):998-1013.
- Dobrolecki LE, Airhart SD, Alferez DG, et al. Patient-derived xenograft (PDX) models in basic and translational breast cancer research. Cancer Metastasis Rev. 2016;35(4):547-573.
- Gao H, Korn JM, Ferretti S, et al. High-throughput screening using patient-derived tumor xenografts to predict clinical trial drug response. Nat Med. 2015;21(11):1318-1325.
- Izumchenko E, Paz K, Ciznadija D, Sloma I, Katz A, Vasquez-Dunddel D, et al. Patient-derived xenografts effectively capture responses to oncology therapy in a heterogeneous cohort of patients with solid tumors. Ann Oncol. 2017;28(10):2595-2605.
- Khanna C, Hunter K. Modeling metastasis in vivo. Carcinogenesis. 2005;26(3):513-523.
- Ribatti D. The chick embryo chorioallantoic membrane (CAM) assay. Reprod Toxicol. 2017;70:97-101.
- Fazio M, Ablain J, Chuan Y, et al. Zebrafish patient avatars in cancer biology and precision cancer therapy. Nat Rev Cancer. 2020;20(5):263-273.
- Drost J, Clevers H. Organoids in cancer research. Nat Rev Cancer. 2018;18(7):407-418.
- Conte N, Mason JC, Halmagyi C, et al. PDX Finder: a portal for patient-derived tumor xenograft model discovery. Nucleic Acids Res. 2019;47(D1):D1073-D1079.
- Meehan TF, Conte N, Goldstein T, et al. PDX-MI: minimal information for patient-derived tumor xenograft models. Cancer Res. 2017;77(21):e62-e66.
- Stripecke R, Münz C, Schuringa JJ, et al. Innovations, challenges, and minimal information for standardization of humanized mice. EMBO Mol Med. 2020;12(7):e8662.
- Brehm MA, Wiles MV, Greiner DL, et al. Generation of improved humanized mouse models for human infectious diseases. J Immunol Methods. 2014;410:3-17.
- King MA, Covassin L, Brehm MA, et al. Human peripheral blood leucocyte non-obese diabetic-severe combined immunodeficiency interleukin-2 receptor gamma chain gene mouse model of xenogeneic graft-versus-host-like disease and the role of host major histocompatibility complex. Clin Exp Immunol. 2009;157(1):104-118.
- Percie du Sert N, Hurst V, Ahluwalia A, et al. The ARRIVE guidelines 2.0: updated guidelines for reporting animal research. Br J Pharmacol. 2020;177(16):3617-3624.
- Sajjad H, Imtiaz S, Noor T, et al. Cancer models in preclinical research: a chronicle review of advancement in effective cancer research. Anim Models Exp Med. 2021;4(2):87-103.
- Mosely SI, Prime JE, Sainson RC, et al. Rational selection of syngeneic preclinical tumor models for immunotherapeutic drug discovery. Cancer Immunol Res. 2017;5(1):29-41.
- Flanagan SP. "Nude", a new hairless gene with pleiotropic effects in the mouse. Genet Res. 1966;8(3):295-309.
- Rygaard J, Povlsen CO. Heterotransplantation of a human malignant tumour to "Nude" mice. Acta Pathol Microbiol Scand. 1969;77(4):758-760.
- Chen J, Liao S, Xiao Z, et al. The development and improvement of immunodeficient mice and humanized immune system mouse models. Front Immunol. 2022;13:1007579.
- Shoemaker RH. The NCI60 human tumour cell line anticancer drug screen. Nat Rev Cancer. 2006;6(10):813-823.
- Barretina J, Caponigro G, Stransky N, et al. The Cancer Cell Line Encyclopedia enables predictive modelling of anticancer drug sensitivity. Nature. 2012;483(7391):603-607.
- Liu M, Yang X. Patient-derived xenograft models: current status, challenges, and innovations in cancer research. Genes Dis. 2025;12(5):101520.
- Rubio-Viqueira B, Jimeno A, Cusatis G, et al. An in vivo platform for translational drug development in pancreatic cancer. Clin Cancer Res. 2006;12(15):4652-61.
- Bertotti A, Migliardi G, Galimi F, et al. A molecularly annotated platform of patient-derived xenografts ("xenopatients") identifies HER2 as an effective therapeutic target in cetuximab-resistant colorectal cancer. Cancer Discov. 2011;1(6):508-23.
- Sartore-Bianchi A, Lonardi S, Martino C, et al. Pertuzumab and trastuzumab emtansine in patients with HER2-amplified metastatic colorectal cancer: the phase II HERACLES-B trial. ESMO Open. 2020;5(5):e000911.
- Ovcharenko D, Chitjian C, Kashkin A, et al. Two dichloric compounds inhibit in vivo U87 xenograft tumor growth. Cancer Biol Ther. 2019;20(9):1281-1289.
- Hernandez MC, Bergquist JR, Leiting JL, et al. Patient-derived xenografts can be reliably generated from patient clinical biopsy specimens. J Gastrointest Surg. 2019;23(4):818-824.
- Noto FK, Sangodkar J, Adedeji BT, et al. The SRG rat, a Sprague-Dawley Rag2/Il2rg double-knockout validated for human tumor oncology studies. PLoS One. 2020;15(10):e0240169.
- De La Rochere P, Guil-Luna S, Decaudin D, et al. Humanized mice for the study of immuno-oncology. Trends Immunol. 2018;39(9):748-763.
- Hoffman RM. Patient-derived orthotopic xenografts: better mimic of metastasis than subcutaneous xenografts. Nat Rev Cancer. 2015;15(8):451-2.
- Okano M, Oshi M, Butash A, et al. Orthotopic implantation achieves better engraftment and faster growth than subcutaneous implantation in breast cancer patient-derived xenografts. J Mammary Gland Biol Neoplasia. 2020;25(1):27-36.
- Scott CL, Becker MA, Haluska P, et al. Patient-derived xenograft models to improve targeted therapy in epithelial ovarian cancer treatment. Front Oncol. 2013;3:295.
- De Vleeschauwer SI, van de Ven M, Oudin A, et al. OBSERVE: guidelines for the refinement of rodent cancer models. Nat Protoc. 2024;19(9):2571-2596.
- Meric-Bernstam F, Lloyd MW, Koc S, et al. Assessment of patient-derived xenograft growth and antitumor activity: the NCI PDXNet consensus recommendations. Mol Cancer Ther. 2024;23(7):924-938.
- Woo XY, Giordano J, Srivastava A, et al.; PDXNET Consortium; EurOPDX Consortium. Conservation of copy number profiles during engraftment and passaging of patient-derived cancer xenografts. Nat Genet. 2021;53(1):86-99.
- Hynds RE, Huebner A, Pearce DR, et al. Representation of genomic intratumor heterogeneity in multi-region non-small cell lung cancer patient-derived xenograft models. Nat Commun. 2024;15(1):4653.
- Wunderlich M, Chou FS, Sexton C, et al. Improved multilineage human hematopoietic reconstitution and function in NSGS mice. PLoS One. 2018;13(12):e0209034.
- Chiorazzi M, Martinek J, Krasnick B, et al. Autologous humanized PDX modeling for immuno-oncology recapitulates features of the human tumor microenvironment. J Immunother Cancer. 2023;11(7):e006921.
- Phoon YP, Lopes JE, Pfannenstiel LW, et al. Autologous human preclinical modeling of melanoma interpatient clinical responses to immunotherapeutics. J Immunother Cancer. 2024;12(4):e008066.
- Tsimafeyeu I, Makhov P, Ovcharenko D, et al. A novel anti-FGFR1 monoclonal antibody OM-RCA-01 exhibits potent antitumor activity and enhances the efficacy of immune checkpoint inhibitors in lung cancer models. Immunooncol Technol. 2024;23:100725.
- Jespersen H, Lindberg MF, Donia M, et al. Clinical responses to adoptive T-cell transfer can be modeled in an autologous immune-humanized mouse model. Nat Commun. 2017;8(1):707.
- Morton JJ, Bird G, Refaeli Y, et al. Humanized mouse xenograft models: narrowing the tumor-microenvironment gap. Cancer Res. 2016;76(21):6153-6158.
- Fløe LVB, Pedersen MG, Møller BK. Animal models in preclinical evaluation of CAR-T cell therapy: advantages and limitations. Biochim Biophys Acta Rev Cancer. 2025;1880(6):189455.
- Andreu-Sanz D, Gregor L, Carlini E, et al. Predictive value of preclinical models for CAR-T cell therapy clinical trials: a systematic review and meta-analysis. J Immunother Cancer. 2025;13(6):e011698.
- Duncan BB, Dunbar CE, Ishii K. Applying a clinical lens to animal models of CAR-T cell therapies. Mol Ther Methods Clin Dev. 2022;27:17-31.
- Yang J, Wu T, Xue F, et al. TRANSPIRE-DRP: a deep learning framework for translating patient-derived xenograft drug response to clinical patients via domain adaptation. J Transl Med. 2025;23(1):1340.
- Tosca EM, Ronchi D, Rocchetti M, et al. Predicting tumor volume doubling time and progression-free survival in untreated patients from patient-derived-xenograft (PDX) models: a translational model-based approach. AAPS J. 2024;26(5):92.
- Ovcharenko D, Mukhin D, Ovcharenko G. Alternative cancer therapeutics: unpatentable compounds and their potential in oncology. Pharmaceutics. 2024;16(9):1237.
- Altogen Labs. Xenograft models in oncology: CDX, PDX, organoids, and humanized immuno-oncology platforms. Austin (TX): Altogen Labs; https://altogenlabs.com/xenograft-models/
- Sirotkin AV, Ovcharenko D, Mlyncek M. Identification of protein kinases that control ovarian hormone release by selective siRNAs. J Mol Endocrinol. 2010;44(1):45-53.