Deze review synthetiseert bewijs over mitochondriale kwaliteitscontrole (biogenese, dynamiek en mitofagie) gedurende de stadia van de spermatogenese, waarbij metabole verschuivingen en structurele remodellering worden gekoppeld aan mannelijke onvruchtbaarheid, en identificeert methodologische lacunes om toekomstig onderzoek te sturen.
Reviewartikel
Mitochondriële kwaliteitscontrole: een poortwachter van de spermatogenese
In dit artikel
Samenvatting
Samenvatting
Mannelijke onvruchtbaarheid neemt wereldwijd toe. Spermatogenese is energetisch veeleisend en nauw gekoppeld aan mitochondriale kwaliteitscontrole (MQC)—waaronder biogenese, fusie-fissie-dynamiek en mitofagie. Hier synthetiseren we het huidige bewijs over de verschillende ontwikkelingsstadia van kiemcellen, waarbij we de stadiumspecifieke verschuivingen benadrukken van ATP-productie ondersteund door glycolyse naar een metabolisme gedomineerd door oxidatieve fosforylering (OXPHOS) en de remodellering van de mitochondriale architectuur tot de middenstukschede. We vatten genetische en functionele gegevens samen die OPA1/MFN1-2 impliceren bij de fusie van het binnen- en buitenmembraan, DRP1/FIS1/MFF bij fissie en de organisatie van de schede, en de rollen van PINK1–Parkin-afhankelijke en -onafhankelijke mitofagie bij mitochondriale kwaliteitscontrole, terwijl we erkennen dat cytoplasmaverwijdering en acrosoomonderhoud tijdens de spermiogenese mogelijk algemene autofagie betreffen in plaats van specifiek mitofagie. Mitochondriale dysfunctie—een overmaat aan reactieve zuurstofverbindingen (ROS), instorting van het mitochondriale membraanpotentiaal (MMP), ontregelde dynamiek of defecte mitofagie—belemmeren de spermatogenese en de spermafunctie. We identificeren ook methodologische tekortkomingen die de vertaling naar de praktijk beperken, in het bijzonder het gebrek aan gestandaardiseerde fenotypering en menselijk genetisch bewijs. Het verduidelijken van de causaliteit en de behandelbaarheid van MQC kan toekomstig diagnostisch of therapeutisch onderzoek naar mannelijke onvruchtbaarheid ondersteunen.
Inleiding
De spermakwaliteit neemt wereldwijd af en de incidentie van mannelijke onvruchtbaarheid veroorzaakt door een abnormale spermakwaliteit neemt toe1. Een recente meta-analyse toonde aan dat tussen 1973 en 2011 de zaadconcentraties bij mannen uit Noord-Amerika, Europa, Australië en Nieuw-Zeeland met 50–60% zijn afgenomen2, en deze daling is sinds 2000 versneld3. De versnelde afname van de spermakwaliteit is wereldwijd gerapporteerd2,3,4,5,6. De redenen voor deze daling vereisen verder onderzoek en gerichte maatregelen om de mannelijke fertiliteit te beschermen.
Spermatogenese vindt plaats in de zaadbuisjes van de testis. Het is een golfachtig proces waarbij specifieke combinaties van spermatogene cellen langs de lange as van de zaadbuisjes betrokken zijn, wat er uiteindelijk toe leidt dat spermatogoniale stamcellen (SSCs) prolifereren en differentiëren tot spermatozoa7. Spermatogenese bij zoogdieren is een van de meest complexe en langdurige differentiatieprocessen in de biologie. Bij mensen beslaat een volledige spermatogene cyclus 64–74 dagen, waarbij elke cyclus van het zaadbuisepitheel 16 dagen duurt. Dit ingewikkelde proces gaat gepaard met aanzienlijke veranderingen in de vorm, het aantal en de distributie van mitochondriën8.
Mitochondriële kwaliteitscontrole (MQC)—de gecoördineerde processen van mitochondriële biogenese, fusie, fissie en selectieve mitofagie—handhaaft de integriteit van organellen onder variërende bioenergetische eisen8,9. In de testis is MQC stadiumspecifiek en ondersteunt het de overgang van prolifererende spermatogonia naar meiose en spermiogenese, wat culmineert in de assemblage van een dichtgepakte mitochondriële schede in het middengedeelte van de spermatozoön9. Figuur 1 presenteert het mechanisme van MQC tijdens de spermatogenese. Verstoring van MQC-componenten kan leiden tot defecte spermatogenese en subfertiliteit bij modelorganismen en mensen. Deze review integreert actuele mechanistische inzichten en schetst translationele mogelijkheden.
Review en perspectief
Spermatogenese en mitochondriaal energiemetabolisme
Spermatogenese omvat drie opeenvolgende fasen: mitotische proliferatie, meiose en spermiogenese, waarbij de proliferatie van spermatogonia, hun differentiatie tot spermatocyten, meiotische deling, rijping van spermatiden en spermiatie in het lumen van de tubuli seminiferi centraal staan. Spermatogonia worden onderverdeeld in reserve- en vernieuwingstypen. Sommige spermatogonia blijven behouden als stamcellen, terwijl andere via differentiatie deelnemen aan de spermatogenese. Daarnaast ondergaan sommige cellen geprogrammeerde celdood, zoals apoptose. Diplïde primaire spermatocyten ondergaan twee rondes van meiotische deling om te differentiëren tot haploïde spermatiden. Tijdens de spermiogenese delen ronde spermatiden zich niet langer en transformeren ze in sterk verlengde spermatiden, die uiteindelijk uitgroeien tot mature spermatozoa.
Spermatogenese vereist gecoördineerde interacties tussen kiemcellen (waaronder spermatogonia, spermatocyten, spermatiden en spermatozoïa) en ondersteunende Sertolicellen, evenals het behoud van de integriteit van de bloed-testisbarrière10,11. De bloed-testisbarrière, gevormd door tight junctions tussen aangrenzende Sertolicellen, verdeelt het zaadstokepitheel in basale en adluminale compartimenten, waardoor een gespecialiseerde micro-omgeving wordt gecreëerd en behouden die essentieel is voor de ontwikkeling van kiemcellen11,12. Bijgevolg vindt spermatogenese—van spermatogoniale stamcellen tot volwassen spermatozoïa—plaats binnen deze unieke testiculaire micro-omgeving. Het proces van zaadproductie is sterk afhankelijk van de mitochondriale functie13. Als energie-metabolisme centrum in eukaryote cellen worden mitochondriën als essentieel beschouwd voor de zaadproductie. De aanmaak van zaadcellen is sterk afhankelijk van de energievoorziening en signaleringsfuncties van mitochondriën. In ontwikkelende kiemcellen leveren mitochondriën niet alleen essentieel ATP voor de spermatogenese, maar beïnvloeden ze het proces ook door deelname aan intracellulaire signalering, celcyclusregulatie en geprogrammeerde celdood13. In Leydigcellen spelen mitochondriën een cruciale rol bij de productie van steroïdhormonen, en mitochondriale ATP-synthese is noodzakelijk voor de testosteronproductie in deze interstitiële cellen van de testis14. Bovendien is mitochondriaal DNA, als het enige organel met onafhankelijk DNA, nauw verbonden met de zaadkwaliteit. Daarom is het begrijpen van de mitochondriale status en de regelmechanismen daarvan belangrijk om het proces van spermatogenese te ontsluieren en de mannelijke fertiliteit te behouden.
Energiemetabolisme is cruciaal voor de spermatogenese, die een aanzienlijke hoeveelheid ATP vereist. De twee primaire routes voor ATP-productie zijn mitochondriale oxidatieve fosforylering (OXPHOS) en glycolyse. De ATP-voorziening is stadiumafhankelijk; terwijl OXPHOS steeds belangrijker wordt tijdens de meiose en de vorming van het middenstuk, draagt glycolyse wezenlijk bij aan de ATP-productie, in het bijzonder in mature spermatozoa. Glycolyse ondersteunt daarnaast de rijping, motiliteit en het transport van sperma door het vrouwelijke voortplantingsstelsel door een flexibele en snelle energievoorziening te bieden.
In spermatogonia en vroege spermatocyten zijn de mitochondriën echter relatief klein en vertonen ze een beperkte OXPHOS-activiteit. Naarmate de spermatogenese vordert naar latere stadia, zoals spermatocyten, spermatiden en spermatozoa, ondergaan de mitochondriën een remodellering en wordt hun OXPHOS-activiteit ruimtelijk meer geconcentreerd en efficiënter. Daarnaast variëren de beschikbare substraten over de verschillende stadia vanwege de bloed-testisbarrière. Spermatogonia, die zich in het basale compartiment van het seminifere epitheel bevinden, hebben toegang tot circulerende glucose en produceren energie via glycolyse. In tegenstelling hiermee zijn spermatocyten en spermatiden in het adluminale compartiment door de bloed-testisbarrière gescheiden van het bloed en het interstitium en zijn zij afhankelijk van Sertoli-cellen om glucose op te nemen via glucosetransporteurs (GLUTs), die dit via glycolyse omzetten in pyruvaat. Pyruvaat wordt vervolgens door lactaatdehydrogenase (LDH) omgezet in lactaat. Lactaat wordt via monocarboxylaattransporteurs (MCTs) naar de spermatocyten getransporteerd, waar het door LDH weer wordt omgezet in pyruvaat, dat vervolgens door pyruvaatdehydrogenase (PDH) kan worden omgezet in acetyl-CoA voor toetreding tot de tricarboxylzuurcyclus (TCA-cyclus). Ten slotte wordt pyruvaat via de mitochondriale pyruvaatdrager naar de mitochondriën getransporteerd om OXPHOS te bevorderen.
Belemmering van de spermatogenese door mitochondriële dysfunctie
Tijdens de spermiatie worden rijpe spermatozoa vanuit de Sertoli-cellen in het lumen van de zaadbuisjes afgegeven, gevolgd door transport naar de epididymis. Dit proces vereist een aanzienlijke energievoorziening vanuit de mitochondriën. Wanneer de mitochondriële functie is aangetast, wordt de spermatogenese belemmerd. Belangrijke tekenen van mitochondriële dysfunctie zijn een excessieve productie van reactieve zuurstofverbindingen (ROS), veranderingen in het mitochondriële membraanpotentiaal (MMP), onevenwichtigheden in de dynamiek van mitochondriële fissie en fusie, een verminderde mitochondriële biogenese, defecte mitofagie en een verstoring van de calciumion-homeostase.
Het proces waarbij mitochondriën ATP produceren via OXPHOS gaat ook gepaard met de productie van ROS. Mitochondriën zijn de belangrijkste bron van ROS, die hoofdzakelijk worden gegenereerd bij de respiratoire complexen I en III van de mitochondriale elektronentransportketen (ETC)15. Onder normale fysiologische omstandigheden zijn passende hoeveelheden ROS betrokken bij signaleringspaden die de spermatogenese reguleren. Echter kan een overmaat aan ROS leiden tot een redox-onbalans, wat oxidatieve stress veroorzaakt en de spermatogenese belemmert. Daarom is de balans tussen het mitochondriale energiemetabolisme en de ROS-productie een sleutelfactor bij het waarborgen van de spermatogenese.
Efficiënte mitochondriële OXPHOS vereist de instroom van respiratoire koolstofsubstraten (bijv. pyruvaat, vetzuren) door het buitenste mitochondriële membraan naar de intermembraanruimte. Deze substraten worden vervolgens via dragers in het binnenste mitochondriële membraan naar de matrix getransporteerd, waar ze deelnemen aan de TCA-cyclus. In de TCA-cyclus ondergaan deze koolstofsubstraten oxidatieve afbraak, waarbij nicotinamidenadineucleotide (NADH) en flavineadeninedinucleotide (FADH2) worden geproduceerd. Deze producten doneren elektronen aan de ETC en stimuleren OXPHOS voor de ATP-synthese uit ADP en anorganisch fosfaat (Pi). Onderbrekingen in de TCA-cyclus of ETC-routes kunnen de spermaproductie belemmeren16. MMP, als indicator voor de cellulaire energiestatus en mitochondriële functie, is geassocieerd met de spermamobiliteit17 en het algemene bevruchtigingsvermogen18.
Onder mitochondriale stress kan fissie beschadigde mitochondriale segmenten scheiden, terwijl fusie de menging van inhoud en functionele complementatie kan bevorderen. Beschadigde of overtollige mitochondriën kunnen vervolgens worden afgebroken en gerecycled via mitofagie. Samen vormen mitochondriale biogenese, fissie, fusie en mitofagie de mitochondriale kwaliteitscontrole (MQC), die de mitochondriale functie en remodellering ondersteunt19.
Spermatogenese omvat de differentiatie van spermatogonia tot spermatozoa, wat niet alleen leidt tot aanzienlijke veranderingen in de celmorfologie, maar ook de ondersteuning en regulatie van het energiemetabolisme vereist. Als energiencentrales van de cel spelen mitochondriën een cruciale rol in sleutelaspecten van de spermatogenese, waaronder de energievoorziening, signaaltransductie en geprogrammeerde celdood. Tijdens de spermatogenese variëren de metabole behoeften van kiemcellen in verschillende ontwikkelingsstadia. Het aantal en de morfologie van de mitochondriën ondergaan aanzienlijke veranderingen tijdens de spermatogenese. Tijdens de vorming van zaadcellen worden veel mitochondriën afgestoten, terwijl de behouden mitochondriën in het middendeel van de zaadcel worden georganiseerd om een mitochondriale schede rond het axonema en de bijbehorende flagellaire structuren te vormen. Daarom ondergaan mitochondriën in verschillende testiculaire cellen tijdens de spermatogenese continu fusie en fissie, waarvoor een efficiënt en nauwkeurig MQC-mechanisme is vereist om hun normale functie te waarborgen en de hoge energievraag van de spermatogenese te ondersteunen. Naarmate zaadcellen worden geproduceerd, ondergaan zowel de morfologie als het aantal mitochondriën aanzienlijke veranderingen, en MQC speelt een kritische rol in dit proces. De belangrijkste doelwitproteïnen die betrokken zijn bij MQC staan vermeld in Tabel 1.
Spermiogenese en mitochondriale dynamiek
Mitochondriën zijn zeer dynamische organellen waarvan de morfologie, grootte en subcellulaire distributie voortdurend worden hervormd door gecoördineerde fusie en fissie—een proces dat collectief mitochondriële dynamiek wordt genoemd. Onder normale fysiologische omstandigheden bestaan fusie en fissie in een dynamisch evenwicht dat de mitochondriële homeostase handhaaft, functionele complementatie faciliteert en een correcte mitochondriële overerving tijdens de celdeling waarborgt. Verstoring van dit evenwicht—of nu door genetische ablatie, defecten in post-translationele modificaties of pathologische stress—belemmert de mitochondriële functie, verslechtert de energieproductie en hindert uiteindelijk de spermatogenese. De precieze regulatie van de mitochondriële dynamiek is bijzonder kritisch in kiemcellen, aangezien de spermatogenese gepaard gaat met dramatische metabole verschuivingen en uitgebreide morfologische hervorming, die stadiumspecifieke aanpassing van de mitochondriële architectuur en activiteit vereisen.
Mitochondriale fusie wordt gemedieerd door MFN1 en MFN2 op het buitenste mitochondriale membraan en OPA1 op het binnenste membraan, wat zorgt voor het mengen van inhoud, functionele complementatie en het behoud van de integriteit van het mitochondriale DNA. Fusie is niet louter een defensieve reactie, maar een contextafhankelijk mechanisme dat de mitochondriale overerving en metabole adaptatie tijdens de differentiatie van kiemcellen ondersteunt. Tijdens de spermatogoniale differentiatie neemt de expressie van MFN toe, en het verlies van zowel MFN1 als MFN2 leidt tot DNA-oxidatie en apoptose in spermatogonia en spermatocyten, wat resulteert in mannelijke onvruchtbaarheid20,21. MFN1-mutaties veroorzaken testiculaire atrofie bij muizen, met een duidelijke afname van spermatocyten en het uitblijven van spermaproductie, terwijl ongedifferentieerde spermatogonia ongemoeid blijven, wat suggereert dat MFN1 vereist is voor de meiotische progressie20. MFN2 reguleert daarentegen zowel mitochondriale functies als functies van het endoplasmatisch reticulum en speelt een eigen specifieke rol in de spermatogenese21.
Mitochondriële deling wordt aangestuurd door DRP1, dat via adaptereiwitten zoals FIS1, MFF, MID49 en MID51 naar het buitenste mitochondriale membraan wordt gerekruteerd. Na rekrutering assembleert DRP1 tot ringvormige oligomeren die mitochondriën op een GTP-afhankelijke wijze vernauwen en verdelen. Het proces omvat drie hoofdstappen: de activering van DRP1 door fosforylering, rekrutering naar het buitenste membraan via interacties met FIS1, MFF, MID49 en MID51, en assemblage tot een ringstructuur die de mitochondriën omcirkelt en vernauwt, waarbij GTP wordt verbruikt en twee afzonderlijke organellen ontstaan. Deling is niet simpelweg een mechanisme voor het opruimen van gedepolariseerde mitochondriën of het voldoen aan een verhoogde energievraag; het is veeleer een gecoördineerd proces dat de mitochondriële distributie, segregatie van beschadigde componenten, overdracht tijdens de celdeling en remodellering van de mitochondriële architectuur reguleert. Muizen die DRP1 missen, zijn embryonaal letaal22,23; MFF-deficiënte muizen vertonen een verminderde fertiliteit en zaadcelcount, wat een waardevol model biedt voor het bestuderen van mitochondriële deling tijdens de ontwikkeling van mannelijke kiemcellen24. Mitochondriële deling is essentieel voor de juiste vorming van de mitochondriële schede tijdens de spermiogenese.
Spermatogenese is energetisch veeleisend en is primair afhankelijk van glycolyse in spermatogonia en OXPHOS in spermatocyten en spermatiden. OXPHOS is bijzonder kritiek tijdens de meiose, en de efficiëntie hiervan is afhankelijk van intacte mitochondriale dynamiek25,26. Na de meiose reguleren MFF en andere fissie-eiwitten de mitochondriale deling en nemen zij deel aan de vorming van de mitochondriale schede van de zaadcel24. Tijdens de spermiogenese worden sommige mitochondriën selectief behouden en omgevormd tot de schede, terwijl overtollige mitochondriën en cytoplasmatische componenten via autofagie worden geëlimineerd27. Eiwitten zoals OPA1, DRP1 en MFF kunnen kandidaat-onderzoekstargets vormen voor het verbeteren van de zaadcelfunctie, maar hun therapeutische relevantie vereist verdere validatie. Verdere investigate van MQC in de menselijke spermatogenese kan toekomstig diagnostisch of therapeutisch onderzoek naar mannelijke onvruchtbaarheid faciliteren.
Spermatogenese en mitochondriële autofagie
Mitofagie speelt een cruciale rol bij de spermatogenese28. Mitofagie omvat primair de insluiting van beschadigde mitochondriën door autofagosomen. De autofagosomen die beschadigde mitochondriën bevatten, fuseren vervolgens met lysosomen, waarna de mitochondriën door lysosomale werking worden afgebroken, waardoor beschadigde mitochondriën worden opgeruimd en kwaliteitscontrole wordt gerealiseerd. Het klassieke pad van mitochondriële autofagie is het PINK1/Parkin-pad, hoewel er ook PINK1/Parkin-onafhankelijke paden zijn beschreven29.
Autofagie helpt bij het behoud van de integriteit van het acrosoom, de polarisatie van spermatiden en de degradatie van cytoplasmatische componenten tijdens de spermatogenese, hoewel deze processen wijzen op algemene autofagie in plaats van selectieve mitofagie, tenzij mitochondriale klaring specifiek wordt aangetoond. Studies hebben uitgewezen dat mitofagie nauw verbonden is met mitochondriale dynamiek, en dat mitochondriale fissie mitofagie kan faciliteren om overtollige of beschadigde mitochondriën te verwijderen30. FIS1, hoewel een eiwit voor mitochondriale fissie, is ook betrokken bij mitofagie tijdens de spermatogenese31. RAB7A is betrokken bij de vorming van mitofagosomen en de rijping van autofagosomen32. FIS1 interageert met het mitochondriale GTPase-activerend eiwit TBC1D1533,34. TBC1D15 reguleert de activiteit van RAB7A, dat betrokken is bij de fusie van blaasjes en lysosomen en de rijping van autofagosomen34,35. Wanneer FIS1 wordt geïnactiveerd, kan RAB7A actief blijven op het mitochondriale oppervlak, wat leidt tot ontregelde groei en tubulatie van het autofagosomemembraan; LC3-aggregatie kan worden waargenomen via optische microscopie35. Mitofagie kan ook onafhankelijk van DRP1-gemedieerde mitochondriale fissie optreden, waardoor fissie niet als verplicht moet worden beschouwd voor mitochondriale klaring35.
Tijdens de spermiogenese worden spermatiden ontdaan van overtollige cellulaire componenten, en studies hebben aangetoond dat autofagosomen het meest overvloedig aanwezig zijn in spermatiden36. Het kerngen voor autofagie Atg7 is in verband gebracht met spermatidenpolarisatie en de verwijdering van cytoplasma tijdens de spermatogenese; vroege kiemceltypen lijken echter minder beïnvloed in deze context27,36. Daarnaast is mitofagie verhoogd in beschadigde testikelmodellen, waaronder Leydig-cellen29, spermatogoniale stamcellen/progenitoren37,38, Sertoli-cellen39 en onrijpe rattestikels die zijn blootgesteld aan toxicanten40. Bij de spermatogenese is mitochondriale autofagie gekoppeld aan apoptose en andere vormen van geprogrammeerde celdood, waardoor de zaadproductie in de testis wordt beïnvloed41,42.
Bibliometrische context
Er is een gerichte bibliometrische analyse uitgevoerd van de Web of Science Core Collection van 1970 tot 2023 met behulp van de zoektermen “spermatogenesis” en “MQC”; studies bij niet-zoogdieren en irrelevante records werden uitgesloten, en VOSviewer 1.6.20 werd gebruikt voor de visualisatie43. Na screening bleven 1.019 artikelen van 1.217 instellingen in 66 landen en 5.705 auteurs over. Het aantal publicaties nam gestaag toe (Figuur 2A). De Verenigde Staten en China droegen de meeste artikelen bij ( respectievelijk 212 en 196), en de Verenigde Staten hadden het hoogste aantal citaties (12.295; Figuur 2B). De netwerken van instellingen en auteurs zijn samengevat in Figuur 2C,D.
Analyse van de co-occurrentie van trefwoorden (frequentie > 7) wees op een nadruk op spermamotiliteit, oxidatieve stress, apoptose/geprogrammeerde celdood, DNA-schade, lipideperoxidatie en spermakwaliteit (Figuur 3). Deze bibliometrische patronen ondersteunen, maar vervangen niet, de mechanistische review: het vakgebied is geconcentreerd rond oxidatieve schade en uitkomsten van motiliteit, terwijl direct bewijs bij mensen dat stadiumspecifieke MQC-routes koppelt aan onvruchtbaarheid beperkt blijft.
Conclusies
Met de vooruitgang van de biotechnologie is het onderzoek naar mannelijke fertiliteit verschoven van beschrijvende morfologie en motiliteit naar de moleculaire en cellulaire mechanismen van spermatogenese. Mitochondriën staan centraal in dit proces: ze genereren ATP, ondersteunen remodellering tijdens meiose en spermiogenese, en zijn zeer gevoelig voor oxidatieve en omgevingsfactoren44. Om de functionaliteit onder dergelijke stress te behouden, zijn mitochondriën afhankelijk van MQC, dat biogenese, fusie-fissie-dynamiek en mitofagie integreert. Verstoring van deze pathways belemmert de ontwikkeling van kiemcellen, de architectuur van het middendeel van de zaadcel en uiteindelijk de fertiliteit. Concluderend ondersteunt het beschikbare bewijs een stadiumspecifiek model waarin mitochondriële dynamiek en mitofagie helpen bij het coördineren van energieproductie, organelremodellering en het verwijderen van beschadigde componenten tijdens de spermatogenese. Echter, direct bewijs bij mensen en gestandaardiseerde fenotypering blijven beperkt, waardoor MQC-gerelateerde eiwitten moeten worden beschouwd als potentiële onderzoekstargets die verdere validatie vereisen, in plaats van als gevestigde therapeutische targets.
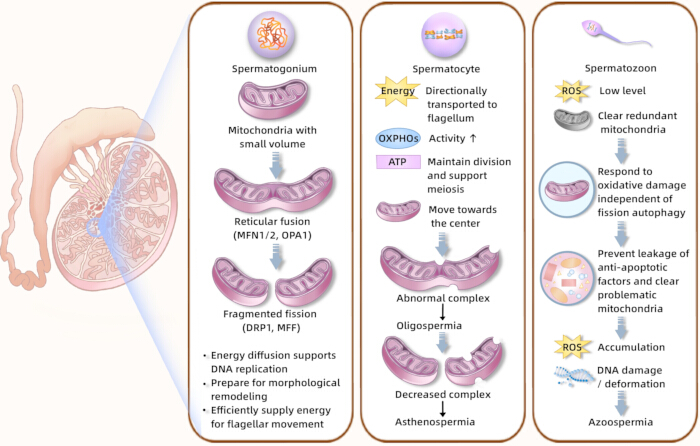
Figuur 1. Het mechanisme van mitochondriale kwaliteitscontrole tijdens de spermatogenese. Stadiumspecifiek energiemetabolisme en mitochondriale remodellering bij spermatogenese. Het schema toont de metabole koppeling tussen Sertoli-cellen en kiemcellen, glucosetransporteurs, monocarboxylaattransporteurs, ATP-productie, de overgang van glycolyse-gestuurd metabolisme naar oxidatieve fosforylering tijdens de meiose en spermiogenese, en mitochondriale schade gerelateerd aan reactieve zuurstofspecies. Afkortingen: ATP = adenosinetrifosfaat; OXPHOS = oxidatieve fosforylering; ROS = reactieve zuurstofspecies. Klik hier om een grotere versie van deze figuur te bekijken.
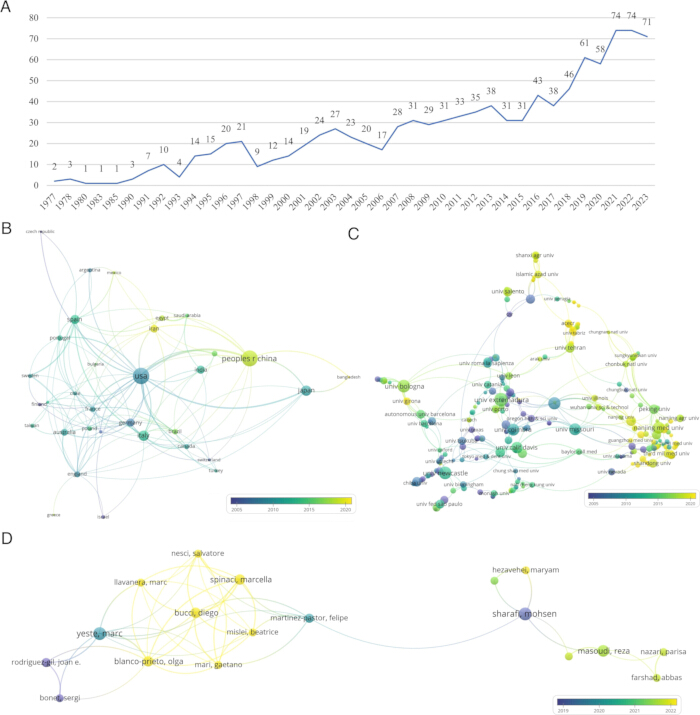
Figuur 2. Nationale, institutionele, auteurspublicaties en collaboratieve analyse. (A) Jaarlijks aantal publicaties op het gebied van spermatogenese en MQC. (B) Temporele distributiekaart van internationale collaboratieve publicaties op het gebied van spermatogenese en MQC. (C) Temporele distributiekaart van institutionele collaboraties op het gebied van spermatogenese en MQC. (D) Temporele distributiekaart van auteurspublicaties op het gebied van spermatogenese en MQC. De knooppunten geven het aantal publicaties aan; de kleur van het knooppunt geeft de publicatietijd aan van vroeger naar recenter; en de lijnen vertegenwoordigen collaboratieve relaties, waarbij dikkere lijnen duiden op nauwere samenwerking. Afkorting: MQC = mitochondrial quality control. Klik hier om een grotere versie van deze figuur te bekijken.
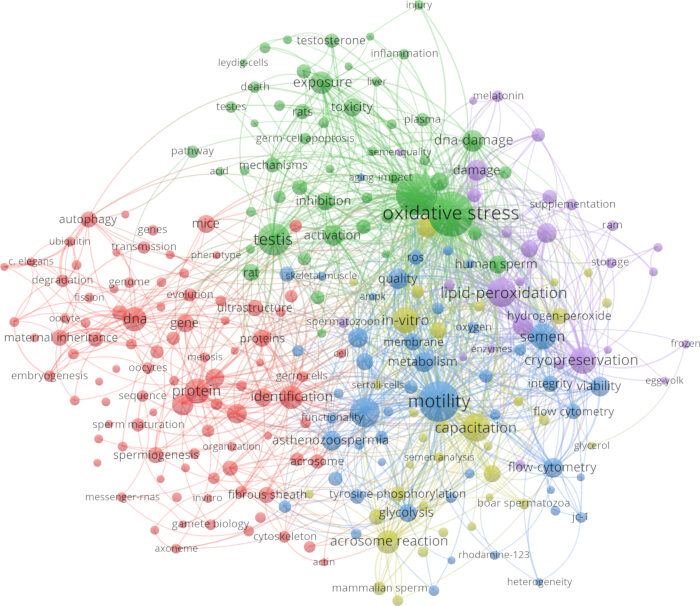
Figuur 3Grafiek van co-occurrentie van trefwoorden met hoge frequentie. De knopen vertegenwoordigen keywords met een hoge frequentie; de grootte van de knoop staat voor de frequentie; de kleur van de knoop geeft de clustering aan, waarbij dezelfde kleur duidt op nauwer verwante onderwerpen; en de lijnen vertegenwoordigen de relaties tussen keywords, waarbij dikkere lijnen duiden op nauwere relaties. Klik hier om een grotere versie van deze figuur te bekijken.
| MQC-proces | Doeleiwit |
| Mitochondriële fusie | Optic atrophy 1 (OPA1) |
| Mitofusine 1 (MFN1) | |
| Mitofusine 2 (MFN2) | |
| Mitochondriële deling | Dynamine-gerelateerd eiwit 1 (DRP1) |
| Mitochondriaal fissie-eiwit 1 (FIS1) | |
| Mitochondriale fissiefactor (MFF) | |
| Mitofagie | PTEN-geïnduceerde vermoedelijke kinase 1 (PINK1) |
| Ubiquitine-proteïneligase Parkin (E3 ubiquitine-proteïneligase Parkin) |
Tabel 1: Belangrijke doeleitproteïnen bij mitochondriale kwaliteitscontrole. De tabel somt representatieve proteïnen op die betrokken zijn bij mitochondriale fusie, mitochondriale fissie en mitofagie tijdens de spermatogenese.
Openbaarmakingen
De auteurs hebben geen belangenconflicten te verklaren.
Dankbetuigingen
Dit werk werd ondersteund door het Ningxia Natural Science Foundation Project (2025AAC030481, 2024AAC03715), de National Natural Science Foundation of China (82560939, 82505601), het Ningxia Key Research and Development Program (2025FRG05005, 2025BEG2008), de Beijing Natural Science Foundation (7254520), de China Postdoctoral Science Foundation (2025T181076), het Young Elite Scientists Sponsorship Program van de China Association of Science and Technology (YESS20240193), het Young Talents Support Program van de China Association of Chinese Medicine (CACM-2024-QNRC2-B17) en het High-Level Key Discipline Construction Project of Traditional Chinese Medicine van de National Administration of Traditional Chinese Medicine (zyyzdxk-2023238).
Referenties
- Esteves SC. Evolution of the World Health Organization semen analysis manual: where are we? Nat Rev Urol. 2022;19(7):439-46.
- Levine H, et al. Temporal trends in sperm count: a systematic review and meta-regression analysis of samples collected globally in the 20th and 21st centuries. Hum Reprod Update. 2023;29(2):157-76.
- Cipriani S, et al. Trend of change of sperm count and concentration over the last two decades: a systematic review and meta-regression analysis. Andrology. 2023;11(6):997-1008.
- Lv MQ, et al. Temporal trends in semen concentration and count among 327 373 Chinese healthy men from 1981 to 2019: a systematic review. Hum Reprod. 2021;36(7):1751-75.
- Li Y, et al. Trends in sperm quality by computer-assisted sperm analysis of 49 189 men during 2015-2021 in a fertility center from China. Front Endocrinol (Lausanne). 2023;14:1194455.
- Bonde JP, te Velde ER. Male factor infertility: declining sperm counts: the never-ending story. Nat Rev Urol. 2017;14(11):645-6.
- Hermo L, Pelletier RM, Cyr DG, Smith CE. Surfing the wave, cycle, life history, and genes/proteins expressed by testicular germ cells. Part 1: background to spermatogenesis, spermatogonia, and spermatocytes. Microsc Res Tech. 2010;73(4):241-78.
- Costa J, et al. Mitochondria quality control and male fertility. Biology (Basel). 2023;12(6):827.
- Varuzhanyan G, Chan DC. Mitochondrial dynamics during spermatogenesis. J Cell Sci. 2020;133(14):jcs235937.
- Wu S, Yan M, Ge R, Cheng CY. Crosstalk between Sertoli and germ cells in male fertility. Trends Mol Med. 2020;26(2):215-31.
- Mruk DD, Cheng CY. The mammalian blood-testis barrier: its biology and regulation. Endocr Rev. 2015;36(5):564-91.
- Ma Y, Ma QW, Sun Y, Chen XF. The emerging role of extracellular vesicles in the testis. Hum Reprod. 2023;38(3):334-51.
- Vertika S, Singh KK, Rajender S. Mitochondria, spermatogenesis, and male infertility: an update. Mitochondrion. 2020;54:26-40.
- Midzak A, et al. Mitochondrial protein import and the genesis of steroidogenic mitochondria. Mol Cell Endocrinol. 2011;336(1-2):70-9.
- Brand MD. Mitochondrial generation of superoxide and hydrogen peroxide as the source of mitochondrial redox signaling. Free Radic Biol Med. 2016;100:14-31.
- Boguenet M, et al. Mitochondria: their role in spermatozoa and in male infertility. Hum Reprod Update. 2021;27(4):697-719.
- Barbagallo F, et al. Evaluation of sperm mitochondrial function: a key organelle for sperm motility. J Clin Med. 2020;9(2):363.
- Gallon F, Marchetti C, Jouy N, Marchetti P. The functionality of mitochondria differentiates human spermatozoa with high and low fertilizing capability. Fertil Steril. 2006;86(5):1526-30.
- Gan Z, Fu T, Kelly DP, Vega RB. Skeletal muscle mitochondrial remodeling in exercise and diseases. Cell Res. 2018;28(10):969-80.
- Zhang J, et al. GASZ and mitofusin-mediated mitochondrial functions are crucial for spermatogenesis. EMBO Rep. 2016;17(2):220-34.
- Chen W, et al. MFN2 plays a distinct role from MFN1 in regulating spermatogonial differentiation. Stem Cell Reports. 2020;14(5):803-17.
- Ishihara N, et al. Mitochondrial fission factor Drp1 is essential for embryonic development and synapse formation in mice. Nat Cell Biol. 2009;11(8):958-66.
- Wakabayashi J, et al. The dynamin-related GTPase Drp1 is required for embryonic and brain development in mice. J Cell Biol. 2009;186(6):805-16.
- Varuzhanyan G, et al. Mitochondrial fission factor (Mff) is required for organization of the mitochondrial sheath in spermatids. Biochim Biophys Acta Gen Subj. 2021;1865(5):129845.
- Miao J, et al. MFN1 and MFN2 are dispensable for sperm development and functions in mice. Int J Mol Sci. 2021;22(24):13507.
- Arslan NP, Keles ON, Gonul-Baltaci N. Effect of titanium dioxide and silver nanoparticles on mitochondrial dynamics in mouse testis tissue. Biol Trace Elem Res. 2022;200(4):1650-8.
- Shang Y, et al. Autophagy regulates spermatid differentiation via degradation of PDLIM1. Autophagy. 2016;12(9):1575-92.
- Vargas JNS, et al. The mechanisms and roles of selective autophagy in mammals. Nat Rev Mol Cell Biol. 2023;24(3):167-85.
- Yi L, et al. Cadmium-induced apoptosis of Leydig cells is mediated by excessive mitochondrial fission and inhibition of mitophagy. Cell Death Dis. 2022;13(11):928.
- Losón OC, Song Z, Chen H, Chan DC. Fis1, Mff, MiD49, and MiD51 mediate Drp1 recruitment in mitochondrial fission. Mol Biol Cell. 2013;24(5):659-67.
- Varuzhanyan G, et al. Fis1 ablation in the male germline disrupts mitochondrial morphology and mitophagy, and arrests spermatid maturation. Development. 2021;148(16):dev199686.
- Tan EHN, Tang BL. Rab7a and mitophagosome formation. Cells. 2019;8(3):224.
- Onoue K, et al. Fis1 acts as a mitochondrial recruitment factor for TBC1D15 that is involved in regulation of mitochondrial morphology. J Cell Sci. 2013;126(1):176-85.
- Yamano K, et al. Mitochondrial Rab GAPs govern autophagosome biogenesis during mitophagy. Elife. 2014;3:e01612.
- Yamashita SI, et al. Mitochondrial division occurs concurrently with autophagosome formation but independently of Drp1 during mitophagy. J Cell Biol. 2016;215(5):649-65.
- Yang P, et al. In vivo autophagy and biogenesis of autophagosomes within male haploid cells during spermiogenesis. Oncotarget. 2017;8(34):56791-801.
- Li T, et al. YTHDF2 controls hexavalent chromium-induced mitophagy through modulating Hif1α and Bnip3 decay via the m6A/mRNA pathway in spermatogonial stem cells/progenitors. Toxicol Lett. 2023;377:38-50.
- Lv Y, et al. Melatonin attenuates chromium (VI)-induced spermatogonial stem cell/progenitor mitophagy by restoration of METTL3-mediated RNA N6-methyladenosine modification. Front Cell Dev Biol. 2021;9:684398.
- Eid N, Ito Y, Otsuki Y. Enhanced mitophagy in Sertoli cells of ethanol-treated rats: morphological evidence and clinical relevance. J Mol Histol. 2012;43(1):71-80.
- Hong Y, et al. X-box binding protein 1 caused an imbalance in pyroptosis and mitophagy in immature rats with di-(2-ethylhexyl) phthalate-induced testis toxicity. Genes Dis. 2024;11(2):935-51.
- Su Y, et al. Mutual promotion of apoptosis and autophagy in prepubertal rat testes induced by joint exposure of bisphenol A and nonylphenol. Environ Pollut. 2018;243:693-702.
- Quan C, et al. Prenatal bisphenol A exposure leads to reproductive hazards on male offspring via the Akt/mTOR and mitochondrial apoptosis pathways. Environ Toxicol. 2017;32(3):1007-23.
- Chen C, Song M. Visualizing a field of research: a methodology of systematic scientometric reviews. PLoS One. 2019;14(10):e0223994.
- Yang M, et al. Melatonin promotes male reproductive performance and increases testosterone synthesis in mammalian Leydig cells. Biol Reprod. 2021;104(6):1322-36.