Deze review vat de rol van DNA-methylering samen bij immuunregulatie en transplantatieafstoting. DNA-methylering reguleert de ontwikkeling en differentiatie van immuuncellen, moduleert de functie van immuuncellen en kan dienen als biomarker en therapeutisch doelwit om de overleving van het transplantaat te verbeteren.
Reviewartikel
Immunologische regulatie van DNA-methylering en de implicaties hiervan voor allograftafstoting
34 weergaven
⸱
11 september 2026
In dit artikel
Samenvatting
Samenvatting
Transplantafstoting blijft een belangrijke barrière voor het overleven van het transplantaat op lange termijn en wordt gedreven door complexe interacties tussen immuunresponsen en moleculaire regulatiemechanismen. DNA-methylering, een belangrijke epigenetische modificatie, speelt een cruciale rol bij de regulatie van de ontwikkeling, differentiatie, rijping en functie van immuuncellen. Aberrante DNA-methylering kan de expressie van immuungerelateerde genen veranderen en de aard en intensiteit van immuunresponsen beïnvloeden. Bij transplantaties kunnen deze veranderingen T-cellen, B-cellen en aangeborene immuuncellen beïnvloeden die betrokken zijn bij de afstoting van het transplantaat. DNA-methylering draagt ook bij aan de regulatie van signaleringspaden die geassocieerd zijn met immuunactivatie, tolerantie en inflammatoire responsen. Veranderingen in methyleringspatronen kunnen daarom zowel de progressie van de afstoting als het behoud van de graftfunctie beïnvloeden. Deze review vat de huidige kennis over DNA-methylering in immuunregulatie samen en onderzoekt de implicaties hiervan voor transplantafstoting, met bijzondere nadruk op tymusontwikkeling, helper- en cytotoxische T-cellen, regulatoire T-cellen, B-cellen, aangeborene immuuncellen en signaleringspaden. Daarnaast wordt de potentiële relevantie van DNA-methylering als biomarker en therapeutisch doelwit bij transplantaties beschouwd. Inzicht in deze epigenetische mechanismen kan de ontwikkeling ondersteunen van nauwkeurigere benaderingen voor het beoordelen van het afstotingsrisico, het moduleren van immuunresponsen en het verbeteren van de resultaten van het transplantaat op lange termijn na transplantatie van solide organen.
Inleiding
Immunologie is de wetenschappelijke discipline die zich bezighoudt met de structuur en functie van het immuunsysteem, inclusief de mechanismen die ten grondslag liggen aan immuunresponsen en het behoud van homeostase na herkenning van eigen en niet-eigen componenten. Het vakgebied omvat ook pathologische processen die voortvloeien uit een ontregelde immuunfunctie. Het immuunsysteem vervult drie fundamentele functies: defensie, surveillance en homeostase. Samen voorkomen deze functies de invasie van externe pathogenen en schadelijke stoffen, elimineren ze niet-eigen componenten in het lichaam en handhaven ze een stabiele interne immuunomgeving. Op basis van de kenmerken van immuunresponsen wordt immuniteit geclassificeerd als aangeboren of adaptief. Aangeboren immuniteit zorgt voor een snelle, aspecifieke respons op vreemde pathogenen, terwijl adaptieve immuniteit een zeer specifieke respons biedt die is gericht tegen specifieke antigenen1,2. Tijdens een immuunrespons reguleren externe en interne factoren de expressie van genen die geassocieerd zijn met de immuunfunctie. Dergelijke regulatie omvat klassieke genetische mechanismen alsmede epigenetische modificaties, waardoor een complex en dynamisch transcriptioneel regulerend netwerk ontstaat3.
De traditionele genetica richt zich op veranderingen in de genfunctie die voortvloeien uit wijzigingen in DNA-sequenties, terwijl epigenetica omkeerbare en erfelijke veranderingen in genexpressie onderzoekt die optreden zonder de onderliggende DNA-sequentie te wijzigen. Omgevingsstimuli, waaronder infecties, blootstelling aan chemicaliën en farmaceutica, evenals interne factoren zoals cytokines en hormonen, kunnen het epigenetische landschap van genen veranderen. Deze veranderingen reguleren de genexpressie en bepalen uiteindelijk de cellulaire fenotypen en biologische functies. De belangrijkste epigenetische mechanismen die genexpressie controleren zijn DNA-methylering, histonmodificatie, chromatineremodeling en regulatie via niet-coderend RNA. Tijdens de vroege embryonale ontwikkeling worden DNA-methyleringsmarkeringen bijna volledig gewist en vervolgens opnieuw vastgesteld tijdens de differentiatie4,5. De nauwkeurige verwijdering en herinstelling van deze epigenetische modificaties zijn essentieel voor een normale cellulaire ontwikkeling, differentiatie en rijping. Daarentegen kunnen aberrante epigenetische veranderingen de genfunctie verstoren en bijdragen aan het ontstaan en de progressie van ziekten6. DNA-methyleringspatronen veranderen ook dynamisch tijdens de ontwikkeling en differentiatie van T-cellen en B-cellen7,8. Deze bevindingen benadrukken de kritieke rol van epigenetische regulatie bij het sturen van de differentiatie van hematopoëtische stamcellen uit het beenmerg naar diverse immuuncellijnen. Histonmodificaties reguleren de differentiatie en functionele plasticiteit van monocyten/macrofagen en helper-T-cellen9,10,11,12,13,14 en beïnvloeden belangrijke signaleringspaden, waaronder Toll-like receptor-paden15,16. De chromatineremodeler Mi-2beta komt sterk tot expressie in thymocyten en reguleert direct de expressie van het CD4-gen en de ontwikkeling van T-cellen17. Niet-coderende RNA's functioneren ook als belangrijke regulatoren van immuunresponsen. Zo speelt interferon-γ (IFN-γ) een centrale rol in de gastheerdefensie tegen intracellulaire bacteriële infecties, terwijl miR-21 de productie van IFN-γ kan onderdrukken door IFN-γ mRNA direct te targeten18. Gezamenlijk benadrukken deze bevindingen de centrale rol van epigenetische mechanismen bij de regulatie van immuunresponsen.
Immuuncellen zijn essentieel voor de immuunfunctie en vormen belangrijke drijvers van transplantaatafwstoting, een cruciale determinant voor de overleving van het transplantaat19,20,21. Hoewel uitgebreide immunologische studies de mechanismen ten grondslag aan transplantaatafwstoting hebben onderzocht, blijven veel aspecten onvoldoende begrepen22. Toenemend bewijs toont bovendien kritieke rollen aan voor epigenetische mechanismen bij de ontwikkeling, differentiatie en rijping van immuuncellen23,24. Onderzoek naar de moleculaire basis van transplantaatafwstoting vanuit een epigenetisch perspectief kan daarom bijdragen aan vroegtijdige interventie en preventie van transplantaatafwstoting en chronische allograft-nefropathie na organtransplantatie, met potentiële voordelen voor de overleving van het transplantaat op lange termijn. Van de verschillende epigenetische modificaties is DNA-methylering het meest stabiele mechanisme dat de transcriptie in het zoogdiergenoom reguleert25. Daarom onderzoekt deze review de rol van DNA-methylering bij de ontwikkeling, differentiatie en functie van immuuncellen, evenals de betrokkenheid ervan bij acute afstoting na organtransplantatie.
Review en perspectief
1. DNA-methylering en sequencingtechnologie
DNA-methylering maakt gebruik van S-adenosylmethionine als methyldonor, waarbij DNA-methyltransferases de covalente additie van een methylgroep aan het vijfde koolstofatoom van cytosine binnen CpG-dinucleotiden (cytosine–fosfaat–guanine) katalyseren, waardoor cytosine wordt omgezet in 5-methylcytosine (5mC). Deze modificatie voegt een extra reguleringslaag toe aan de genexpressie, naast de DNA-sequentie zelf. Over het algemeen maken regio's met lage methyleringsniveaus eiwitbinding mogelijk en ondersteunen ze een chromatinestructuur die actieve gentranscriptie bevordert26. In tegenstelling hiermee kunnen gemethyleerde DNA-regio's gentranscriptie en -expressie onderdrukken door het rekruteren van methyl-CpG-bindende domein (MBD)-eiwitten, het stimuleren van histonmodificaties en chromatinemodelleringscomplexen, of door direct de binding van transcriptiefactoren en andere DNA-bindende eiwitten te blokkeren27,28,29. DNA-methylering kan echter ook geassocieerd zijn met genactivatie, met name binnen genlichaamregio's, waar het positief correleert met genexpressie. Hoewel deze relatie minder vaak voorkomt, is methylering van het genlichaam gebruikelijk in overal tot expressie gebrachte genen30,31.
De biologische functie van DNA-methylering moet worden geïnterpreteerd binnen de genomische context. CpG-dinucleotiden clusteren vaak in regio's die CpG-eilanden worden genoemd, welke worden gedefinieerd als DNA-segmenten langer dan 200 baseparen (bp), met een G+C-gehalte van ten minste 50% en een waargenomen/verwachte (Obs/Exp) ratio van ten minste 0,632. In het zoogdiergenoom zijn CpG-dinucleotiden relatief zeldzaam en vormen zij slechts ongeveer 1% van het genoom. Ongeveer 60% van de menselijke genpromotoren is geassocieerd met CpG-eilanden, en deze regio's zijn doorgaans ongemethyleerd in normale cellen. Slechts een klein deel (~6%) raakt gemethyleerd tijdens de vroege ontwikkeling of weefseldifferentiatie33,34. CpG-shores verwijzen naar regio's binnen 2.000 bp stroomopwaarts en stroomafwaarts van CpG-eilanden, en hun methyleringsstatus correleert nauw met transcriptionele silencing. Ongeveer 70% van de differentieel gemethyleerde regio's bevindt zich in CpG-shores tijdens methyleringsherprogrammering23,35. Bovendien vindt de meeste weefselspecifieke methylering plaats in shores in plaats van in CpG-eilanden34,35. CpG-shelves bevinden zich binnen 2.000 bp stroomopwaarts en stroomafwaarts van CpG-shores, terwijl de term “open sea” verwijst naar alle overige genomische regio's buiten de CpG-eilanden, shores en shelves.
DNA-methylering vindt plaats via twee hoofdprocessen: onderhoudsmethylering en de novo-methylering. Onderhoudsmethylering vindt primair plaats tijdens semiconservatieve DNA-replicatie, waarbij onderhoudsmethyltransferases bestaande methyleringspatronen kopiëren naar de dochterstreng. DNMT1 fungeert als het belangrijkste onderhoudsmethyltransferase; het richt zich bij voorkeur op hemimethylated DNA, is het meest overvloedige methyltransferase in cellen en wordt actief getranscribeerd tijdens de S-fase van de celcyclus36. In tegenstelling hiermee stelt de novo-methylering nieuwe methyleringspatronen vast, onafhankelijk van DNA-replicatie, door zich te richten op voorheen ongemethyleerde locaties. DNMT3A en DNMT3B fungeren als de primaire de novo-methyltransferases. Deze worden sterk tot expressie gebracht in embryonale stamcellen en spelen essentiële rollen bij het vaststellen van methyleringspatronen tijdens de embryonale ontwikkeling, maar hun expressie neemt af naarmate cellen differentiëren27. De DNMT3-familie omvat ook DNMT3L, dat geen katalytische activiteit bezit maar cruciaal is voor het vaststellen van maternale genomische imprinting37. DNMT3L versterkt de activiteit van DNMT3A en DNMT3B, waardoor de efficiëntie van DNA-methylering wordt verbeterd38. In het gehele genoom ondergaan veel gemethyleerde cytosines DNA-demethylering, met name binnen genbody-regio's. Demethylering vindt plaats via actieve en passieve mechanismen. Actieve demethylering omvat de oxidatie van 5mC tot geoxideerde derivaten door TET-enzymen39. Passieve demethylering daarentegen is het resultaat van de geleidelijke verdunning van gemethyleerde cytosines tijdens DNA-replicatie wanneer de activiteit van het onderhoudsmethyltransferase ontbreekt40.
Omdat DNA-methylering een centrale rol speelt bij het reguleren van gentranscriptie en -expressie, is dit het afgelopen decennium een belangrijk onderzoeksdoel geworden, mede gedreven door vorderingen in technologieën voor methyleringsdetectie. Op basis van verschillen in de voorbehandeling van monsters kunnen benaderingen voor DNA-methyleringsdetectie breed worden ingedeeld in drie categorieën41. De eerste benadering berust op methyleringsgevoelige restrictie-endonucleasen, die selectief geen gemethyleerde DNA-regio's splitsen en zo fragmenten van verschillende groottes genereren, afhankelijk van de methyleringsstatus. De tweede benadering verrijkt gemethyleerde DNA-fragmenten met behulp van methyleringsbindende eiwitten of antilichamen die specifiek 5-methylcytosine herkennen. De derde benadering maakt gebruik van bisulfietbehandeling om ongemethyleerde cytosines om te zetten in uracilen, terwijl gemethyleerde cytosines ongewijzigd blijven, wat een nauwkeurige discriminatie tussen gemethyleerde en ongemethyleerde sites mogelijk maakt. Momenteel is bisulfietconversie in combinatie met next-generation sequencing de meest gebruikte strategie voor het analyseren van DNA-methylering. Tabel 1 vat de belangrijkste benaderingen voor methyleringsdetectie samen, inclusief hun principes, voordelen, beperkingen en potentiële toepassingen in transplantatieonderzoek. Voortdurende vorderingen in DNA-methyleringsdetectietechnologieën breiden de technische toolkit voor epigenetisch onderzoek uit en ondersteunen de ontwikkeling van nieuwe epigenetische therapeutische strategieën41,42,43,44,45.
2. Methylatiekenmerken van vroege thymische celontwikkeling en -differentiatie
Transplantafstoting omvat complexe mechanismen die zowel celgemedieerde als antilichaamgemedieerde immuunresponsen bevatten. Huidig bewijs in de transplantatie-immunologie wijst erop dat T-celgemedieerde immuniteit een centrale rol speelt bij graftafstoting46,47. De thymus fungeert als het primaire orgaan voor de ontwikkeling, differentiatie en rijping van T-cellen48. Tijdens de ontwikkeling van thymocyten, het precursorstadium van T-cellen, ondergaan DNA-methyleringspatronen voortdurende en dynamische remodellering. Deze veranderingen omvatten zowel demethylering als methylering op genomische regio's die de T-celtranscriptie reguleren, hoewel deze processen niet volledig in evenwicht plaatsvinden. Tijdens de vroege ontwikkeling ondergaan genen die coderen voor belangrijke T-celreceptor (TCR)-componenten en essentiële regulatoire factoren, waaronder CD3, RUNX3, RORC, RAG1 en LCK, voornamelijk demethylering7. In bredere zin komt DNA-demethylering vaker voor dan methylering tijdens de differentiatie van immuuncellen49,50. Daarentegen is de novo methylering relatief beperkt en vindt deze hoofdzakelijk plaats tijdens het vroege commitmentstadium van de thymocytontwikkeling7. De novo methylering is daarnaast cruciaal voor het uitschakelen van genen die geassocieerd zijn met het pluripotente potentieel van stamcellen, waardoor lineage-commitment en differentiatie mogelijk worden7,51. Een andere belangrijke eigenschap van DNA-methylering in thymocyten is dat de meeste methyleringsveranderingen stabiel blijven en grotendeels onomkeerbaar zijn zodra ze tijdens de differentiatie zijn vastgelegd. Echter vertonen sommige genen, zoals de RAG-genen, een dynamische regulatie: zij ondergaan demethylering tijdens de vroege ontwikkeling van immuuncellen en worden vervolgens in latere stadia opnieuw gemethyleerd7.
3. DNA-methylering bij differentiatie en functie van immuuncellen
DNA-methylering speelt een cruciale rol bij het reguleren van de differentiatie, functie en plasticiteit van diverse immuuncelpopulaties, waardoor de uitkomst van immuunresponsen bij transplantaties wordt beïnvloed.
- Adaptieve immuuncellen
- Helper T-cellen (CD4+ T-cellen)
CD4+ T-cellen fungeren als de primaire effectorcellen bij acute orgaantransplantatierafstoting52,53. Naïeve T-cellen (Tn) differentiëren in meerdere CD4+ T-cel-subsets via gecoördineerde genetische, epigenetische en aanvullende regulatoire mechanismen. Bij stimulatie door specifieke signalen kan het epigenetische landschap van naïeve T-cellen veranderen, waardoor de gentranscriptie en -expressie worden beïnvloed. Deze veranderingen kunnen uiteindelijk zowel het type als de intensiteit van de immuunafstoting na transplantatie beïnvloeden. Na T-celactivatie ondergaat het IL2-gen een snelle demethylering en blijft het in een ongemethyleerde staat. Deze epigenetische verandering is essentieel voor het versterken van de transcriptie en expressie van genen die de T-celfunctie ondersteunen54.
DNA-methylering speelt ook een cruciale rol bij het sturen van de differentiatie van naïeve T-cellen naar Th1- en Th2-subsets55,56. In naïeve CD4+ T-cellen is het IFNG-gen sterk gemethyleerd; het wordt specifiek tijdens Th1-differentiatie gedemethyleerd, terwijl het in Th2-cellen sterk gemethyleerd blijft57. In tegenstelling hiermee is het IL4-gen sterk gemethyleerd in naïeve T-cellen en Th1-cellen, maar ondergaat het een gedeeltelijke demethylering in Th2-cellen58. Externe factoren kunnen deze methyleringspatronen verder reguleren door de activiteit van DNA-methyltransferasen (DNMT's) te moduleren. Zo verhoogt een vitamine D-tekort de DNMT-activiteit en bevordert het hypermethylering van het IFNG-gen, terwijl vitamine D-supplementen deze veranderingen kunnen omkeren59. Biologische veroudering beïnvloedt ook DNA-methyleringspatronen. Studies, waaronder die van Yu, tonen aan dat de DNMT3a mRNA-expressie en methylering van de IL4-genpromotor toenemen met de leeftijd, terwijl de methylering van de IFNG-genpromotor afneemt60. Deze bevindingen suggereren dat leeftijdsgerelateerde veranderingen in DNA-methylering de balans tussen Th1- en Th2-celresponsen kunnen verschuiven.
De differentiatie van naïeve T-cellen omvat ook twee andere belangrijke CD4+ T-cel-subsets: Th17- en regulatoire T-cellen (Treg-cellen)61,62. DNA-methylering reguleert dit proces strikt. De expressie van de Th17-specifieke transcriptiefactor RORγt en het cytokine IL-17 is afhankelijk van de methyleringsstatus van hun respectievelijke genpromotorregio's63,64,65. Th17-cellen in graftweefsels kunnen transplantatieafstoting verergeren en vasculaire schade bevorderen66. DNA-methylering beïnvloedt ook de functionele plasticiteit van Th17-cellen. Onder omstandigheden van chronische ontsteking blijft het IFNG-gen in Th17-cellen gedemethyleerd, waardoor deze cellen IFN-γ kunnen produceren. Als gevolg hiervan kunnen Th17-cellen kenmerken van zowel Th1- als Th17-fenotypes verkrijgen67. Bovendien tonen in vitro-studies aan dat specifieke stimulatiecondities Th17-cellen kunnen aanzetten tot differentiatie in functionele Treg-cellen met sterke immunosuppressieve activiteit68.
In contrast hiermee spelen Treg-cellen een cruciale rol bij het behoud van immuuntolerantie en het bewaren van de homeostase binnen grafts69. Deze cellen kunnen ontstaan in de thymus of differentiëren in de periferie onder invloed van TGF-β; ongeacht hun oorsprong an expresar Treg-cellen consistent de transcriptiefactor Foxp370. Epigenetische regulatie, en met name DNA-methylering, speelt een sleutelrol bij het beheersen van de expressie van genen die geassocieerd zijn met de Treg-functie, waaronder Foxp3 en Ctla4, waardoor hun transcriptionele activiteit direct wordt beïnvloed71,72,73,74. Tijdens de ontwikkeling van thymische Treg-cellen ondergaat het Foxp3-gen progressieve demethylering. Deze gedemethyleerde staat persisteert nadat de cellen naar perifere weefsels migreren en vereist aanhoudende TCR-signalering van passende sterkte62,75,76,77. In afwezigheid van DNMT1 kan TCR-stimulatie effectief Foxp3-expressie induceren in Foxp3-negatieve T-cellen in zowel de thymus als perifere weefsels. Echter, indien TCR-stimulatie er niet in slaagt voldoende epigenetische remodellering te induceren, kunnen cellen geen stabiele Foxp3-expressie handhaven, wat essentieel is voor het behoud van het Treg-fenotype62,75,78. Stabiele expressie van Foxp3 wordt grotendeels gecontroleerd door epigenetische modificaties bij cis-regulatoire elementen, in het bijzonder geconserveerde niet-coderende sequenties (CNS)71,79,80. Hiervan dient de methyleringsstatus van de Treg-specifieke gedemethyleerde regio (TSDR) als een betrouwbare marker om stabiele van instabiele Treg-populaties te onderscheiden71,81,82,83,84,85,86. In natuurlijk voorkomende naïeve Treg-cellen (nTregs) blijft de TSDR ongemethyleerd, wat de rekrutering van transcriptiefactoren zoals Stat5, NFAT, Runx1 en CREB mogelijk maakt, die stabiele Foxp3-expressie ondersteunen. In contrast hiermee is de TSDR in geïnduceerde Treg-cellen (iTregs) doorgaans gemethyleerd, wat leidt tot een minder stabiele Foxp3-expressie72,74,87,88,89. Daarnaast leidt het verlies van demethyleringsenzymen zoals TET1 of TET2 tot hypermethylering van de Foxp3-locus, wat de Treg-functie verslechtert en de ontwikkeling van auto-immuunziekten bevordert90. Klinische studies tonen verder aan dat hogere niveaus van Foxp3-demethylering in nier-allograft-biopsie monsters met subklinische afstoting geassocieerd zijn met verbeterde graftresultaten82,84.
Treg-cellen zijn in toenemende mate onderzocht als middel om allograftafstoting te voorkomen en immuuntolerantie te bevorderen91. Een voldoende aantal Treg-cellen moet binnen de graft persisteren om effector T-cellen die transplantatieafstoting stimuleren effectief te onderdrukken en zo de immuuntolerantie te handhaven92. Treg-cellen vertonen echter een zekere mate van fenotypische instabiliteit. Onder bepaalde omstandigheden kunnen ze epigenetische veranderingen ondergaan, waaronder demethylering van het RORC-gen, wat leidt tot expressie van het pro-inflammatoire cytokine IL-1793,94. Deze verschuiving benadrukt de plasticiteit van Treg-cellen en vormt een uitdaging voor hun therapeutische toepassing. Experimentele studies suggereren verder dat epigenetische modulatie de Treg-functie kan verbeteren. Zo toonden Guo et al. in diermodellen aan dat de combinatie van DNA-methyleringsremmers met IL-35 de Foxp3-expressie verhoogt, de differentiatie van Treg-cellen bevordert en de overleving van de graft verbetert95. Ondanks deze vorderingen blijft het begrip van Treg-cel-gerelateerde mechanismen onvolledig. Toekomstige studies moeten de condities definiëren die Treg-differentiatie bevorderen en het Treg-fenotype stabiliseren, met als doel deze bevindingen toe te passen op de behandeling van immuungemedeerde ziekten. - Cytotoxische T-cellen (CD8+ T-cellen)
Na activatie differentiëren naïeve CD8+ T-cellen tot cytotoxische effectorcellen, bekend als cytotoxische T-lymfocyten (CTL's). Deze cellen worden doorgaans ingedeeld in twee subsets: Tc1-cellen, die IFN-γ produceren, en Tc2-cellen, die IL-4 en IL-5 produceren96. Klinische studies tonen aan dat de proportie CD69+/CD8+ T-cellen in het perifere bloed van harttransplantatiepatiënten correleert met ernstige afstoting. Daarnaast vertonen CD8+ T-cellen in myocardweefsel een CD69+ geactiveerd fenotype en vertonen ze perforine-gemedieerde cytotoxische activiteit97,98. Experimenteel bewijs ondersteunt verder de rol van CD8+ T-cellen bij transplantatieafstoting. Jones et al. demonstreerden dat in T-cel-depleteerde muizen, gegenereerd via thymectomie en anti-CD4/CD8-behandeling, de overdracht van enkel TCR-antigeenspecifieke CD8+ T-cellen voldoende is om afstoting van volledig gemistechte allogene hartgrafts te induceren99. Deze bevindingen benadrukken de kritische bijdrage van CD8+ T-cellen aan immuungemedeerde graftafstoting. DNA-methylering reguleert ook de ontwikkeling en functie van CD8+ T-cellen. In afwezigheid van DNMT1 is de overleving van thymocyten verminderd100. Daarnaast bevordert deletie van DNMT3a in mature CD8+ T-cellen de differentiatie van geheugencellen, terwijl de terminale effectordifferentiatie wordt verminderd. Dit effect wordt gedeeltelijk gemedieerd door een verhoogde expressie van T-cel factor 1 (Tcf1), aangezien DNMT3a zich richt op de promotorregio van het Tcf7-gen en de novo methylering induceert in vroege effector CD8+ T-cellen101. Bovendien versterkt conditionele deletie van TET2 in T-cellen de vorming van geheugen CD8+ T-cellen in een muismodel van acute virale infectie102. Samen tonen deze bevindingen aan dat DNA-methylering de ontwikkeling, differentiatie en functionele responsen van CD8+ T-cellen kritisch reguleert. - B-cellen
T-cellen spelen een centrale rol bij transplantatieafstoting; B-cellen dragen echter ook bij aan zowel cellulaire als humorale afstotingsresponsen103,104. Humorale afstoting wordt primair gemedieerd door B-lymfocyten. Na activatie differentiëren B-cellen in plasmacellen die grote hoeveelheden specifieke antilichamen produceren en uitscheiden, wat inflammatoire schade in de graft kan triggeren105. DNA-methylering reguleert verder de immuunresponsen van B-cellen. Lee et al. toonden aan dat er uitgebreide DNA-demethylering plaatsvindt tijdens de vroege B-celontwikkeling, met name binnen genlichaamregio's en niet-CpG-eilandregio's. In contrast hiermee wordt de regulatoire invloed van DNA-methylering minder uitgesproken in latere stadia van B-celmaturatie106. Daarnaast identificeerden Shaknovich et al. significante verschillen in DNA-methyleringsprofielen tussen kiemcentrum B-cellen en naïeve B-cellen107. Kiemcentrum B-cellen ondergaan demethylering, wat de expressie van functionele genen verandert en belangrijke signaleringspaden beïnvloedt, waaronder de NF-κB- en MAPK-paden107,108. Functionele studies tonen verder aan dat DNA-methylering de B-celactiviteit beperkt. Deletie van de de novo methyltransferasen Dnmt3a en Dnmt3b (Dnmt3-deficiëntie) bevordert de ontwikkeling en maturatie van B-cellen. Tegelijkertijd versterkt het de B-celactivatie en ondersteunt het de expansie van kiemcentrum B-cellen en plasmacellen. Deze bevindingen wijzen erop dat de novo DNA-methylering normaal gesproken dient om B-celactivatie te beperken en plasmaceldifferentiatie te remmen109.
- Helper T-cellen (CD4+ T-cellen)
- Innate immuuncellen
De immuunrespons na transplantatie van een solide orgaan omvat gecoördineerde interacties tussen de innate en adaptieve immuniteit. Het innate immuunsysteem omvat hematopoëtische en niet-hematopoëtische cellen zoals dendritische cellen, macrofagen, natural killer-cellen en neutrofielen, die allen kunnen bijdragen aan immuunafstoting na transplantatie110.
Dendritische cellen fungeren als sleutelregulatoren die de innate en adaptieve immuniteit verbinden, met het vermogen om zowel immuunactivatie als tolerantie te bevorderen111,112. Tijdens differentiatie uit monocyten ondergaan dendritische cellen uitgebreide veranderingen in DNA-methylering, gekenmerkt door een sterke afname van methyleringsniveaus in vele genomische regio's. Deze veranderingen treden voornamelijk op bij enhancerregio's en transcriptiefactor-bindingsplaatsen die essentieel zijn voor lineage-specificatie en immuunactivatie113,114,115. Een kenmerk van dit differentiatieproces is de downregulatie van CD14 en upregulatie van CD209 op het celoppervlak. Deze verschuiving correleert met demethylering van CpG-plaatsen binnen de promotorregio van het CD209-gen116. Bovendien verhoogt behandeling met DNA-methyleringsremmers de expressie van co-stimulerende moleculen zoals CD40 en CD86 aanzienlijk, waardoor antigeenpresentatie wordt versterkt en de functionele maturatie van dendritische cellen wordt bevorderd. Deze bevindingen wijzen erop dat DNA-methylering de dendritische celfunctie en immuunactiviteit direct reguleert117.
Monocyten en macrofagen zijn essentiële componenten van het immuunsysteem omdat ze de fagocytose en klaring van abnormale cellen en binnendringende pathogenen mediëren. Uitgebreid bewijs laat zien dat macrofagen niet alleen bijdragen aan de inflammatoire schade die wordt waargenomen bij vroege acute transplantatieafstoting, maar ook aan de progressie van fibrose tijdens late chronische afstoting118,119. De balans tussen M1-macrofagen (klassiek geactiveerd) en M2-macrofagen (alternatief geactiveerd) reguleert immuunresponsen kritisch. Een verschuiving naar dominantie van M1-macrofagen bevordert ontsteking en weefselschade. In contrast hiermee verlaagt het verminderen van de DNMT1-expressie, hetzij via DNA-methyleringsremmers of gen-knockout, de methylering bij de peroxisoom-proliferatie-geactiveerde receptor γ1 (PPARγ1)-promotor. Deze verandering bevordert M2-macrofaagactivatie en helpt immuungemedeerde schade te beperken120. Verschillen in DNA-methyleringspatronen benadrukken verder de rol van epigenetische regulatie in de macrofaagfunctie. Studies hebben significante variatie geïdentificeerd in promotor-methylering van specifieke genen in perifere bloedmonocyten/macrofagen tussen individuen met en zonder coronaire arterieziekte121. Daarnaast omvat de differentiatie van monocyten tot macrofagen aanzienlijke veranderingen in methylering bij transcriptiefactor-bindingsplaatsen, wat aangeeft dat DNA-methylering in sleutelregulatoire regio's een precieze en kritische rol speelt bij macrofaagdifferentiatie122.
Natural killer (NK)-cellen oefenen zowel effector- als regulatoire functies uit bij transplantatieafstoting. Ze kunnen graftafstoting bevorderen en tegelijkertijd bijdragen aan de ontwikkeling van immuuntolerantie. Tijdens de differentiatie van hematopoëtische stamcellen in het beenmerg tot NK-cellen leidt verminderde methylering van het KIR-gen tot verhoogde KIR-expressie, wat een belangrijke rol speelt in immuunregulatie. Bovendien induceert behandeling met DNA-methyleringsremmers demethylering van het KIR-gen en bevordert dit de expressie ervan in NK-cellen123,124. Deze bevindingen wijzen erop dat DNA-methylering een sleutelregulator is van de NK-celfunctie.
Neutrofielen nemen ook actief deel aan transplantatieafstoting. Geactiveerde neutrofielen laten een reeks mediatoren vrij die antigeenpresenterende cellen rekruteren en activeren, waardoor antigeenspecifieke T-celresponsen worden geïnitieerd en immuunafstoting wordt versterkt125,126,127. PRV-1, een ankerprotein dat tot expressie komt op neutrofielen, wordt gereguleerd door DNA-methylering bij de promotorregio onder zowel fysiologische als pathologische omstandigheden128.
4. DNA-methylering in belangrijke signaleringspaden
DNA-methylering reguleert niet alleen direct de transcriptie van functionele genen, maar beïnvloedt ook het cellulaire gedrag door belangrijke signaleringsroutes te moduleren. Zo leidt hypermethylering van de promoterregio van het gen voor het gesecreteerde frizzled-gerelateerde eiwit (SFRP) tot gen-silencing. Deze silencing verstoort de normale regulatie van de Wnt/β-catenin-signaleringsroute, wat resulteert in een aberrante activering en de ontwikkeling van colorectaal carcinoom bevordert129. Op soortgelijke wijze vermindert hypermethylering van stroomopwaartse negatieve regulatoren van de mTOR-signaleringsroute in immuuncellen hun expressie, wat leidt tot overmatige mTOR-activering en bijdraagt aan inflammatoire schade in diabetische nieren. Interventies zoals decitabine of RNA-interferentie kunnen de methylering van deze regulatoire genen verminderen door DNMT1 te remmen, waardoor de progressie van diabetische nefropathie wordt getemperd130. Daarnaast kunnen DNA-methyltransferase-remmers de celproliferatie onderdrukken door signaleringsroutes zoals NF-κB en JAK/STAT te reguleren, waardoor de ziekteontwikkeling en -progressie worden beïnvloed131,132 (Figuur 1).
5. Klinische implicaties: interacties tussen immunosuppressieve geneesmiddelen en DNA-methylering
Standaard immunosuppressiva zijn in staat om DNA-methyleringspatronen in immuuncellen te beïnvloeden, hoewel de effecten variëren per geneesmiddel en genomische context. Studies naar de methylering van de IFNγ-promotor in T-cellen toonden aan dat mycophenolzuur de demethylering die door T-celactivatie wordt geïnduceerd tegengaat, terwijl tacrolimus dit effect op deze specifieke locus niet vertoont133. In tegenstelling hiermee is aangetoond dat sirolimus globale methyleringsprofielen moduleert via de effecten op mTOR-signaleringspaden134, en is bewezen dat DNA-methylering zelf het mTOR-pad reguleert, waardoor de overleving van allografts en acute afstoting na niertransplantatie worden beïnvloed135. Bovendien induceren glucocorticoiden zoals dexamethason uitgebreide DNA-methyleringsremodellering binnen het perifere immuuncompartiment. De dexamethason-methyleringsindex voor neutrofielen dient als een gevoelige farmacodynamische marker voor glucocorticoid-blootstelling en is geassocieerd met immunosuppressieve immuunprofielen136. Er is ook gemeld dat ATG-inductietherapie het DNA-methyloom van niertransplantatieontvangers verandert, en er is aangetoond dat op methylering gebaseerde modellen het infectierisico effectiever kunnen voorspellen dan transcriptomische profielen137. Individuele epigenetische variabiliteit kan de respons van patiënten op deze therapieën beïnvloeden, wat suggereert dat methyleringsbiomarkers mogelijk kunnen helpen bij het sturen van gepersonaliseerde immunosuppressieve schema's136,137. Deze interacties tussen geneesmiddelen en het epigenoom verdienen verder onderzoek, omdat ze significante implicaties kunnen hebben voor het optimaliseren van de langetermijnresultaten van grafts.
6. Uitdagingen en perspectieven: Het balanceren van epigenetische modulatie met immuunveiligheid
Ondanks hun potentieel bij transplantaties brengen DNMT-remmers (DNMTis), zoals azacitidine en decitabine, infectieuze en oncogene risico's met zich mee. Behandeling met deze middelen is geassocieerd met ernstige septische complicaties138,139, en systemische blootstelling aan hypomethylerende middelen is ook geassocieerd met een verhoogd risico op transformatie naar secundaire acute myeloïde leukemie, waarbij getroffen patiënten een mediane totale overleving vertoonden van minder dan 5 maanden140. Naast geneesmiddelgerelateerde toxiciteiten vormt het gebrek aan celtypspecificiteit een belangrijke uitdaging. Systemische demethylering kan het Treg-compartiment destabiliseren terwijl effector T-cellen worden geactiveerd, wat afstoting potentieel kan verergeren141, en kan de bescherming van CD8+ memory T-cellen tegen opportunistische pathogenen zoals CMV in gevaar brengen101,102.
Om deze beperkingen te overwinnen, zijn er nieuwe strategieën gericht op het bereiken van celtype- en locus-specifieke modulatie. Nanodeeltjesplatformen kunnen DNMT bij voorkeur afleveren in cellen die het transplantaat infiltreren142,143. CRISPR/dCas9 epigenoommodificatie maakt gerichte demethylering van Foxp3-TSDR mogelijk om Tregs te stabiliseren zonder globale effecten144,145. Monitoring op basis van biomarkers kan mogelijk ook een veiligere klinische translatie ondersteunen146.
Conclusies
Het verbeteren van de overleving van het transplantaat blijft een primair doel in het onderzoek naar organtransplantatie. Transplantafstoting is een complex immunologisch proces waarbij epigenetische modificaties van zowel het donororgaan als de ontvanger dynamisch interageren om het algehele epigenetische landschap vorm te geven. Het immuunsysteem van de ontvanger is een belangrijke drijfveer van transplantafstoting. Epigenetische mechanismen reguleren op kritieke wijze de ontwikkeling, differentiatie en functie van immuuncellen, waardoor ze de afstotingsreacties en de overleving van het transplantaat na transplantatie beïnvloeden. Daarnaast compliceren factoren zoals immunosuppressieve geneesmiddelen, infecties en de omgeving na de transplantatie de relatie tussen epigenetische regulatie en immuunresponsen verder. Deze factoren kunnen epigenetische patronen veranderen en het gedrag van immuuncellen modificeren, wat een extra laag van complexiteit toevoegt aan de uitkomsten van de transplantatie. Verder onderzoek naar de relatie tussen epigenetische mechanismen en transplantafstoting is daarom nodig om nieuwe biomarkers en therapeutische doelwitten te identificeren en om diagnostische benaderingen en behandelstrategieën bij organtransplantatie te verbeteren.
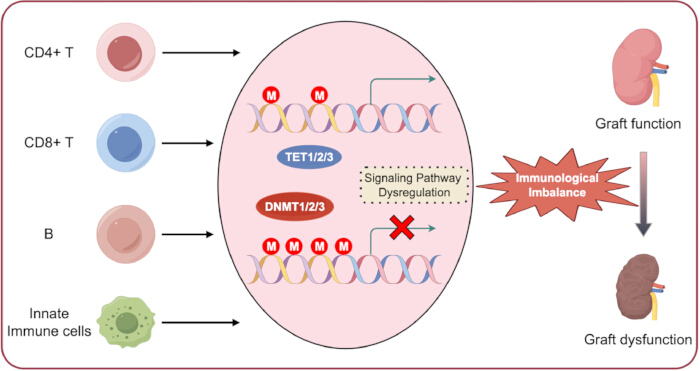
Figuur 1DNA-methylering bij transplantatie-immuniteit. Immuuncellen behouden gedurende hun levensduur verschillende intrinsieke DNA-methyleringspatronen. Verstoring van dit fysiologische proces kan leiden tot aberrante DNA-methylering en dysregulatie van downstream signaleringspaden, wat uiteindelijk resulteert in een verslechterde immuunhomeostase en allograftdysfunctie.Klik hier om een grotere versie van deze figuur te bekijken.
| Methode | Principe | Voordelen | Beperkingen | Toepassingen bij transplantatie |
| MeDIP-seq⁴¹ | Verrijking met anti-5mC antilichamen + NGS | Kosteneffectief voor genoombrede analyse; geschikt voor grote steekproefcohorten | Lage resolutie (~100–300 bp); kan geen onderscheid maken tussen 5mC en 5hmC | Screening van globale methyleringsveranderingen in PBMC's van transplantatieontvangers |
| WGBS⁴² | Bisulfietconversie + NGS | Resolutie op enkelvoudig basniveau; genoombrede dekking | Hoge kosten; vereist een groot datavolume | Uitgebreide methyloommapping van graftbiopten; identificatie van nieuwe afstotingsgerelateerde DMR's |
| RRBS⁴³ | Verrijking met restrictie-enzymen + bisulfietconversie + NGS | Kosteneffectief; hoge dekking van CpG-rijke regio's | Beperkte dekking van non-CpG en CpG-arme regio's | Gerichte methyloomanalyse in graftweefsel met lagere sequeneringskosten |
| Methylatiespecifieke PCR⁴⁴ | Bisulfietconversie + PCR met methylatiespecifieke primers | Hoge gevoeligheid; eenvoudig, snel en goedkoop | Richten zich slechts op specifieke loci; kwalitatieve of beperkte kwantitatieve analyse | Validatie van kandidaat-DMR's uit ontdekkingscohorten; ontwikkeling van klinische biomarkers |
| Pyrosequencing⁴⁵ | Bisulfietconversie + sequencing-by-synthesis | Kwantitatief; resolutie op enkelvoudig basniveau bij gerichte loci | Gemiddelde doorvoer; vereist voorafgaande identificatie van het doelwit | Precieze kwantificatie van methyleringsniveaus op specifieke CpG-sites, zoals FOXP3 TSDR in Treg-cellen |
Tabel 1: Overzicht van de belangrijkste benaderingen voor het detecteren van DNA-methylering. De tabel geeft een overzicht van veelgebruikte methoden voor het detecteren van DNA-methylering, hun principes, voordelen, beperkingen en potentiële toepassingen in transplantatieonderzoek.
Openbaarmakingen
De auteurs verklaren dat er geen concurrerende belangen of potentiële belangenverstrengelingen zijn.
Dankbetuigingen
De auteurs danken Figdraw voor de hulp bij het opstellen van de figuren.
Referenties
- Güell-Alonso R, Cabrera-Pérez R, Vives J. Immunocompatibility in transplantation: adapting to a changing therapeutic landscape. Front Immunol. 2025;16:1648534.
- Li XQ, Ding RD, Cai JZ. Organ transplantation: current status, challenges, and future prospects. MedComm. 2026;7(1):e70567.
- Medzhitov R, Horng T. Transcriptional control of the inflammatory response. Nat Rev Immunol. 2009;9:692–703.
- Bagci H, Fisher AG. DNA demethylation in pluripotency and reprogramming: the role of tet proteins and cell division. Cell Stem Cell. 2013;13:265–269.
- Gu TP, et al. The role of Tet3 DNA dioxygenase in epigenetic reprogramming by oocytes. Nature. 2011;477:606–610.
- Cedar H, Bergman Y. Programming of DNA methylation patterns. Annu Rev Biochem. 2012;81:97–117.
- Rodriguez RM, et al. Regulation of the transcriptional program by DNA methylation during human αβ T-cell development. Nucleic Acids Res. 2015;43:760–774.
- Rauch TA, et al. A human B cell methylome at 100-base pair resolution. Proc Natl Acad Sci U S A. 2009;106:671–678.
- Hardbower DM, et al. Ornithine decarboxylase regulates M1 macrophage activation and mucosal inflammation via histone modifications. Proc Natl Acad Sci U S A. 2017;114:E751–E760.
- De Santa F, et al. The histone H3 lysine-27 demethylase Jmjd3 links inflammation to inhibition of polycomb-mediated gene silencing. Cell. 2007;130:1083–1094.
- Antignano F, Zaph C. Regulation of CD4 T-cell differentiation and inflammation by repressive histone methylation. Immunol Cell Biol. 2015;93:245–252.
- Wei G, et al. Global mapping of H3K4me3 and H3K27me3 reveals specificity and plasticity in lineage fate determination of differentiating CD4+ T cells. Immunity. 2009;30:155–167.
- Liu Z, et al. The histone H3 lysine-27 demethylase Jmjd3 plays a critical role in specific regulation of Th17 cell differentiation. J Mol Cell Biol. 2015;7:505–516.
- He H, et al. Histone methylation mediates plasticity of human FOXP3(+) regulatory T cells by modulating signature gene expressions. Immunology. 2014;141:362–376.
- Menden H, et al. Histone deacetylase 6 regulates endothelial MyD88-dependent canonical TLR signaling, lung inflammation, and alveolar remodeling in the developing lung. Am J Physiol Lung Cell Mol Physiol. 2019;317:L332–L346.
- Irizarry-Caro RA, et al. TLR signaling adapter BCAP regulates inflammatory to reparatory macrophage transition by promoting histone lactylation. Proc Natl Acad Sci U S A. 2020;117:30628–30638.
- Williams CJ, et al. The chromatin remodeler Mi-2beta is required for CD4 expression and T cell development. Immunity. 2004;20:719–733.
- Yang F, et al. MiR-21 is remotely governed by the commensal bacteria and impairs anti-TB immunity by down-regulating IFN-γ. Front Microbiol. 2020;11:512581.
- Nankivell BJ, Kuypers DR. Diagnosis and prevention of chronic kidney allograft loss. Lancet. 2011;378:1428–1437.
- Zununi Vahed S, et al. Genetics and epigenetics of chronic allograft dysfunction in kidney transplants. Iran J Kidney Dis. 2016;10:1–9.
- Goldberg RJ, Weng FL, Kandula P. Acute and chronic allograft dysfunction in kidney transplant recipients. Med Clin North Am. 2016;100:487–503.
- Wood KJ, Bushell A, Hester J. Regulatory immune cells in transplantation. Nat Rev Immunol. 2012;12:417–430.
- Ji H, et al. Comprehensive methylome map of lineage commitment from haematopoietic progenitors. Nature. 2010;467:338–342.
- Suarez-Alvarez B, Rodriguez RM, Fraga MF, Lopez-Larrea C. DNA methylation: a promising landscape for immune system-related diseases. Trends Genet. 2012;28:506–514.
- Eckhardt F, et al. DNA methylation profiling of human chromosomes 6, 20 and 22. Nat Genet. 2006;38:1378–1385.
- Thomson JP, et al. CpG islands influence chromatin structure via the CpG-binding protein Cfp1. Nature. 2010;464:1082–1086.
- Esteller M. Epigenetic gene silencing in cancer: the DNA hypermethylome. Hum Mol Genet. 2007;16(Spec No 1):R50–R59.
- Lopez-Serra L, Esteller M. Proteins that bind methylated DNA and human cancer: reading the wrong words. Br J Cancer. 2008;98:1881–1885.
- Kuroda A, et al. Insulin gene expression is regulated by DNA methylation. PLoS One. 2009;4:e6953.
- Hellman A, Chess A. Gene body-specific methylation on the active X chromosome. Science. 2007;315:1141–1143.
- Jones PA. Functions of DNA methylation: islands, start sites, gene bodies and beyond. Nat Rev Genet. 2012;13:484–492.
- Esteller M. Epigenetics in evolution and disease. Lancet. 2008;372:S90–S96.
- Straussman R, et al. Developmental programming of CpG island methylation profiles in the human genome. Nat Struct Mol Biol. 2009;16:564–571.
- Irizarry RA, et al. The human colon cancer methylome shows similar hypo- and hypermethylation at conserved tissue-specific CpG island shores. Nat Genet. 2009;41:178–186.
- Doi A, et al. Differential methylation of tissue- and cancer-specific CpG island shores distinguishes human induced pluripotent stem cells, embryonic stem cells and fibroblasts. Nat Genet. 2009;41:1350–1353.
- Portela A, Esteller M. Epigenetic modifications and human disease. Nat Biotechnol. 2010;28:1057–1068.
- Bourc'his D, et al. Dnmt3L and the establishment of maternal genomic imprints. Science. 2001;294:2536–2539.
- Gowher H, et al. Mechanism of stimulation of catalytic activity of Dnmt3A and Dnmt3B DNA-(cytosine-C5)-methyltransferases by Dnmt3L. J Biol Chem. 2005;280:13341–13348.
- Wu X, Zhang Y. TET-mediated active DNA demethylation: mechanism, function and beyond. Nat Rev Genet. 2017;18:517–534.
- Bochtler M, Kolano A, Xu GL. DNA demethylation pathways: additional players and regulators. Bioessays. 2017;39:1–13.
- Laird PW. Principles and challenges of genomewide DNA methylation analysis. Nat Rev Genet. 2010;11:191–203.
- Lister R, et al. Human DNA methylomes at base resolution show widespread epigenomic differences. Nature. 2009;462:315–322.
- Meissner A, et al. Reduced representation bisulfite sequencing for comparative high-resolution DNA methylation analysis. Nucleic Acids Res. 2005;33:5868–5877.
- Herman JG, et al. Methylation-specific PCR: a novel PCR assay for methylation status of CpG islands. Proc Natl Acad Sci U S A. 1996;93:9821–9826.
- Colella S, et al. Sensitive and quantitative universal pyrosequencing methylation analysis of CpG sites. Biotechniques. 2003;35:114–120.
- Nankivell BJ, Alexander SI. Rejection of the kidney allograft. N Engl J Med. 2010;363:1451–1462.
- Gelman AE, et al. CD4+ T lymphocytes are not necessary for the acute rejection of vascularized mouse lung transplants. J Immunol. 2008;180:4754–4762.
- Seo W, Taniuchi I. Transcriptional regulation of early T-cell development in the thymus. Eur J Immunol. 2016;46:531–538.
- Calvanese V, et al. A promoter DNA demethylation landscape of human hematopoietic differentiation. Nucleic Acids Res. 2012;40:116–131.
- Lee ST, et al. A global DNA methylation and gene expression analysis of early human B-cell development reveals a demethylation signature and transcription factor network. Nucleic Acids Res. 2012;40:11339–11351.
- Challen GA, et al. Dnmt3a is essential for hematopoietic stem cell differentiation. Nat Genet. 2011;44:23–31.
- Chitilian HV, et al. The strength of cell-mediated xenograft rejection in the mouse is due to the CD4+ indirect response. Xenotransplantation. 1998;5:93–98.
- Pierson RN, et al. Xenogeneic skin graft rejection is especially dependent on CD4+ T cells. J Exp Med. 1989;170:991–996.
- Bruniquel D, Schwartz RH. Selective, stable demethylation of the interleukin-2 gene enhances transcription by an active process. Nat Immunol. 2003;4:235–240.
- Sanders VM. Epigenetic regulation of Th1 and Th2 cell development. Brain Behav Immun. 2006;20:317–324.
- Wilson CB, Rowell E, Sekimata M. Epigenetic control of T-helper-cell differentiation. Nat Rev Immunol. 2009;9:91–105.
- Schoenborn JR, et al. Comprehensive epigenetic profiling identifies multiple distal regulatory elements directing transcription of the gene encoding interferon-gamma. Nat Immunol. 2007;8:732–742.
- Santangelo S, et al. Chromatin structure and DNA methylation of the IL-4 gene in human T(H)2 cells. Chromosome Res. 2009;17:485–496.
- Jiao X, et al. Vitamin D deficiency during pregnancy affects the function of Th1/Th2 cells and methylation of IFN-γ gene in offspring rats. Immunol Lett. 2019;212:98–105.
- Xia Y, et al. Age-related changes in DNA methylation associated with shifting Th1/Th2 balance. Inflammation. 2016;39:1892–1903.
- Muranski P, Restifo NP. Essentials of Th17 cell commitment and plasticity. Blood. 2013;121:2402–2414.
- Ohkura N, et al. T cell receptor stimulation-induced epigenetic changes and Foxp3 expression are independent and complementary events required for Treg cell development. Immunity. 2012;37:785–799.
- Janson PCJ, et al. Profiling of CD4+ T cells with epigenetic immune lineage analysis. J Immunol. 2011;186:92–102.
- Thomas RM, Sai H, Wells AD. Conserved intergenic elements and DNA methylation cooperate to regulate transcription at the il17 locus. J Biol Chem. 2012;287:25049–25059.
- Huang Y, et al. Decipherer manifestations and Treg/Th17 imbalance in multi-staging rheumatoid arthritis and correlation with TSDR/RORC methylation. Mol Immunol. 2020;127:1–11.
- Yuan X, et al. A novel role of CD4 Th17 cells in mediating cardiac allograft rejection and vasculopathy. J Exp Med. 2008;205:3133–3144.
- Cohen CJ, et al. Human Th1 and Th17 cells exhibit epigenetic stability at signature cytokine and transcription factor loci. J Immunol. 2011;187:5615–5626.
- Ye J, et al. Human tumor-infiltrating Th17 cells have the capacity to differentiate into IFN-γ+ and FOXP3+ T cells with potent suppressive function. Eur J Immunol. 2011;41:936–951.
- Issa F, Chandrasekharan D, Wood KJ. Regulatory T cells as modulators of chronic allograft dysfunction. Curr Opin Immunol. 2011;23:648–654.
- Josefowicz SZ, Rudensky A. Control of regulatory T cell lineage commitment and maintenance. Immunity. 2009;30:616–625.
- Baron U, et al. DNA demethylation in the human FOXP3 locus discriminates regulatory T cells from activated FOXP3(+) conventional T cells. Eur J Immunol. 2007;37:2378–2389.
- Kim HP, Leonard WJ. CREB/ATF-dependent T cell receptor-induced FoxP3 gene expression: a role for DNA methylation. J Exp Med. 2007;204:1543–1551.
- Morikawa H, et al. Differential roles of epigenetic changes and Foxp3 expression in regulatory T cell-specific transcriptional regulation. Proc Natl Acad Sci U S A. 2014;111:5289–5294.
- Polansky JK, et al. Methylation matters: binding of Ets-1 to the demethylated Foxp3 gene contributes to the stabilizationization of Foxp3 expression in regulatory T cells. J Mol Med (Berl). 2010;88:1029–1040.
- Toker A, et al. Active demethylation of the Foxp3 locus leads to the generation of stable regulatory T cells within the thymus. J Immunol. 2013;190:3180–3188.
- Jordan MS, et al. Thymic selection of CD4+CD25+ regulatory T cells induced by an agonist self-peptide. Nat Immunol. 2001;2:301–306.
- Kawahata K, et al. Generation of CD4(+)CD25(+) regulatory T cells from autoreactive T cells simultaneously with their negative selection in the thymus and from nonautoreactive T cells by endogenous TCR expression. J Immunol. 2002;168:4399–4405.
- Josefowicz SZ, Wilson CB, Rudensky AY. Cutting edge: TCR stimulation is sufficient for induction of Foxp3 expression in the absence of DNA methyltransferase 1. J Immunol. 2009;182:6648–6652.
- Floess S, et al. Epigenetic control of the foxp3 locus in regulatory T cells. PLoS Biol. 2007;5:e38.
- Polansky JK, et al. DNA methylation controls Foxp3 gene expression. Eur J Immunol. 2008;38:1654–1663.
- Barzaghi F, et al. Demethylation analysis of the FOXP3 locus shows quantitative defects of regulatory T cells in IPEX-like syndrome. J Autoimmun. 2012;38:49–58.
- Bestard O, et al. Intragraft regulatory T cells in protocol biopsies retain foxp3 demethylation and are protective biomarkers for kidney graft outcome. Am J Transplant. 2011;11:2162–2172.
- Liu J, et al. T regulatory cells in cord blood—FOXP3 demethylation as reliable quantitative marker. PLoS One. 2010;5:e13267.
- Wieczorek G, et al. Quantitative DNA methylation analysis of FOXP3 as a new method for counting regulatory T cells in peripheral blood and solid tissue. Cancer Res. 2009;69:599–608.
- Zhuo C, et al. Higher FOXP3-TSDR demethylation rates in adjacent normal tissues in patients with colon cancer were associated with worse survival. Mol Cancer. 2014;13:153.
- Lal G, et al. Epigenetic regulation of Foxp3 expression in regulatory T cells by DNA methylation. J Immunol. 2009;182:259–273.
- Zhou L, Chong MM, Littman DR. Plasticity of CD4+ T cell lineage differentiation. Immunity. 2009;30:646–655.
- Burchill MA, et al. IL-2 receptor beta-dependent STAT5 activation is required for the development of Foxp3+ regulatory T cells. J Immunol. 2007;178:280–290.
- Kanamori M, et al. Induced regulatory T cells: their development, stability, and applications. Trends Immunol. 2016;37:803–811.
- Yang R, et al. Hydrogen sulfide promotes Tet1- and Tet2-mediated Foxp3 demethylation to drive regulatory T cell differentiation and maintain immune homeostasis. Immunity. 2015;43:251–263.
- Issa F, Robb RJ, Wood KJ. The where and when of T cell regulation in transplantation. Trends Immunol. 2013;34:107–113.
- Issa F, Wood KJ. CD4+ regulatory T cells in solid organ transplantation. Curr Opin Organ Transplant. 2010;15:757–764.
- Suarez-Alvarez B, Baragano Raneros A, Ortega F, Lopez-Larrea C. Epigenetic modulation of the immune function: a potential target for tolerance. Epigenetics. 2013;8:694–702.
- Schmidl C, et al. Epigenetic reprogramming of the RORC locus during in vitro expansion is a distinctive feature of human memory but not naive Treg. Eur J Immunol. 2011;41:1491–1498.
- Guo H, et al. Inhibiting cardiac allograft rejection with interleukin-35 therapy combined with decitabine treatment in mice. Transpl Immunol. 2013;29:99–104.
- Betts RJ, Kemeny DM. CD8+ T cells in asthma: friend or foe? Pharmacol Ther. 2009;121:123–131.
- Schwengerdt KO, Fricker FJ, Bahjat KS, Kuntz ST. Increased expression of the lymphocyte early activation marker CD69 in peripheral blood correlates with histologic evidence of cardiac allograft rejection. Transplantation. 2000;69:2102–2107.
- Rutella S, et al. Induction of CD69 antigen on normal CD4+ and CD8+ lymphocyte subsets and its relationship with the phenotype of responding T-cells. Cytometry. 1999;38:95–101.
- Jones ND, et al. T-cell activation, proliferation, and memory after cardiac transplantation in vivo. Ann Surg. 1999;229:570–578.
- Lee PP, et al. A critical role for Dnmt1 and DNA methylation in T cell development, function, and survival. Immunity. 2001;15:763–774.
- Ladle BH, et al. De novo DNA methylation by DNA methyltransferase 3a controls early effector CD8+ T-cell fate decisions following activation. Proc Natl Acad Sci U S A. 2016;113:10631–10636.
- Carty SA, et al. The loss of TET2 promotes CD8(+) T cell memory differentiation. J Immunol. 2018;200:82–91.
- Schiffer L, et al. Chemokine CXCL13 as a new systemic biomarker for B-cell involvement in acute T cell-mediated kidney allograft rejection. Int J Mol Sci. 2019;20(10):2552. doi:10.3390/ijms20102552.
- Xu H, He X, Xu R. B cell activating factor, renal allograft antibody-mediated rejection, and long-term outcome. J Immunol Res. 2018;2018:5251801.
- Schmitz R, et al. B cells in transplant tolerance and rejection: friends or foes? Transpl Int. 2020;33:30–40.
- Lee ST, et al. A global DNA methylation and gene expression analysis of early human B-cell development reveals a demethylation signature and transcription factor network. Nucleic Acids Res. 2012;40:11339–11351.
- Shaknovich R, et al. DNA methyltransferase 1 and DNA methylation patterning contribute to germinal center B-cell differentiation. Blood. 2011;118:3559–3569.
- Caron G, et al. Cell-cycle-dependent reconfiguration of the DNA methylome during terminal differentiation of human B cells into plasma cells. Cell Rep. 2015;13:1059–1071.
- Barwick BG, et al. B cell activation and plasma cell differentiation are inhibited by de novo DNA methylation. Nat Commun. 2018;9:1900.
- Kaur BP, Secord E. Innate immunity. Pediatr Clin North Am. 2019;66:905–911.
- Steinman RM, Banchereau J. Taking dendritic cells into medicine. Nature. 2007;449:419–426.
- Merad M, Collin M, Bromberg J. Dendritic cell homeostasis and trafficking in transplantation. Trends Immunol. 2007;28:353–359.
- Zhang X, et al. DNA methylation dynamics during ex vivo differentiation and maturation of human dendritic cells. Epigenetics Chromatin. 2014;7:21.
- Pacis A, et al. Bacterial infection remodels the DNA methylation landscape of human dendritic cells. Genome Res. 2015;25:1801–1811.
- Klug M, et al. Active DNA demethylation in human postmitotic cells correlates with activating histone modifications, but not transcription levels. Genome Biol. 2010;11:R63.
- Bullwinkel J, Lüdemann A, Deberry J, Singh PB. Epigenotype switching at the CD14 and CD209 genes during differentiation of human monocytes to dendritic cells. Epigenetics. 2011;6:45–51.
- Frikeche J, et al. Impact of the hypomethylating agent 5-azacytidine on dendritic cells function. Exp Hematol. 2011;39:1056–1063.
- van den Bosch TP, et al. CD16+ monocytes and skewed macrophage polarization toward M2 type hallmark heart transplant acute cellular rejection. Front Immunol. 2017;8:346.
- Wang YY, et al. Macrophage-to-myofibroblast transition contributes to interstitial fibrosis in chronic renal allograft injury. J Am Soc Nephrol. 2017;28:2053–2067.
- Wang X, et al. Epigenetic regulation of macrophage polarization and inflammation by DNA methylation in obesity. JCI Insight. 2016;1:e87748.
- Bakshi C, Vijayvergiya R, Dhawan V. Aberrant DNA methylation of M1-macrophage genes in coronary artery disease. Sci Rep. 2019;9:1429.
- Dekkers KF, et al. Human monocyte-to-macrophage differentiation involves highly localized gain and loss of DNA methylation at transcription factor binding sites. Epigenetics Chromatin. 2019;12:34.
- Li G, Yu M, Weyand CM, Goronzy JJ. Epigenetic regulation of killer immunoglobulin-like receptor expression in T cells. Blood. 2009;114:3422–3430.
- Schenk A, Bloch W, Zimmer P. Natural killer cells—an epigenetic perspective of development and regulation. Int J Mol Sci. 2016;17:326.
- Scapini P, et al. The neutrophil as a cellular source of chemokines. Immunol Rev. 2000;177:195–203.
- Chertov O, Yang D, Howard OM, Oppenheim JJ. Leukocyte granule proteins mobilize innate host defenses and adaptive immune responses. Immunol Rev. 2000;177:68–78.
- Hirayama S, et al. Prevention of neutrophil migration ameliorates rat lung allograft rejection. Mol Med. 2006;12:208–213.
- Jelinek J, et al. Epigenetic control of PRV-1 expression on neutrophils. Exp Hematol. 2007;35:1677–1683.
- Suzuki H, et al. Epigenetic inactivation of SFRP genes allows constitutive WNT signaling in colorectal cancer. Nat Genet. 2004;36:417–422.
- Chen G, et al. Aberrant DNA methylation of mTOR pathway genes promotes inflammatory activation of immune cells in diabetic kidney disease. Kidney Int. 2019;96:409–420.
- Shang D, Han T, Xu X, Liu Y. Decitabine induces G2/M cell cycle arrest by suppressing p38/NF-κB signaling in human renal clear cell carcinoma. Int J Clin Exp Pathol. 2015;8:11140–11148.
- Zhu Z, et al. STAT3 signaling pathway is involved in decitabine induced biological phenotype regulation of acute myeloid leukemia cells. Am J Transl Res. 2015;7:1896–1907.
- Peters F, et al. Interferon-gamma DNA methylation is affected by mycophenolic acid but not by tacrolimus after T-cell activation. Front Immunol. 2017;8:822.
- Kraig E, et al. A randomized control trial to establish the feasibility and safety of rapamycin treatment in an older human cohort: immunological, physical performance, and cognitive effects. Exp Gerontol. 2018;105:53–69.
- Zhu C, et al. DNA methylation modulates allograft survival and acute rejection after renal transplantation by regulating the mTOR pathway. Am J Transplant. 2021;21(2):567–581.
- Wiencke JK, et al. DNA methylation as a pharmacodynamic marker of glucocorticoid response and glioma survival. Nat Commun. 2022;13(1):5537.
- Hsu FM, et al. DNA methylation predicts infection risk in kidney transplant recipients. Life Sci Alliance. 2025;8(7):e202403124. doi:10.26508/lsa.202403124.
- Bai JF, et al. Efficacy and safety of venetoclax and azacitidine for acute myeloid leukemia in China: a real-world single-center study. BMC Cancer. 2025;25(1):990.
- Arora S, et al. Tumor lysis syndrome and infectious complications during treatment with venetoclax combined with azacitidine or decitabine in patients with acute myeloid leukemia. Leuk Res. 2022;117:106844.
- Batra A, et al. Characteristics and survival of secondary acute myeloid leukemia from myelodysplastic syndromes in older adults: a population analysis. Clin Lymphoma Myeloma Leuk. 2025;25(6):e417–e423.
- Bai L, Hao X, Keith J, Feng Y. DNA methylation in regulatory T cell differentiation and function: challenges and opportunities. Biomolecules. 2022;12(9):1282.
- Trinh A, Huang Y, Shao H, et al. Targeting the ADPKD methylome using nanoparticle-mediated combination therapy. APL Bioeng. 2023;7(2):026111.
- Yuan N, Ma Z, Xue Z, et al. DNMT1-targeted macrophages delivering drug-loaded nanoparticles attenuate heart allograft fibrosis via PTPRD-STAT3/6 axis. Cell Death Discov. 2026. doi:10.1038/s41420-026-03295-5.
- Cameron J, Martino P, Nguyen L, Li X. Cutting edge: CRISPR-based transcriptional regulators reveal transcription-dependent establishment of epigenetic memory of Foxp3 in regulatory T cells. J Immunol. 2020;205(11):2953–2958.
- Liu XS, et al. Rescue of fragile X syndrome neurons by DNA methylation editing of the FMR1 gene. Cell. 2018;172:979–992.e6.
- Velut Y, Poulet G, Bersez T, et al. Epigenetic signatures on plasma cell-free DNA to detect kidney allograft rejection in a non-invasive way: development of a 10-plex digital PCR assay. Biomark Res. 2025;13:118.