Dit protocol biedt een praktische en reproduceerbare workflow voor het synchroniseren van gecultiveerde cellen, het uitvoeren van gespreide tijdreeksbemonstering gedurende 24–72 u zonder nachtelijke collectie, en het analyseren van de expressie van circadiane klokgenen.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Circadiaanse ritmes in een petrischaal: synchroniseren van mHypoE-42-cellen uit de hypothalamus van muizen voor analyse van de expressie van circadiaanse klokgenen
In dit artikel
Samenvatting
Samenvatting
Circadiane ritmes zijn endogene oscillaties van ongeveer 24 h die een breed scala aan cellulaire en fysiologische processen reguleren, waaronder genexpressie, metabolisme en gedrag. Deze ritmes ontstaan uit onderling verbonden transcriptionele-translationele feedbackloops die reageren op temporele en omgevingssignalen. Omdat circadiane regulatie zeer dynamisch is, kunnen zelfs kleine experimentele variaties de fase, amplitude en ritmiciteit beïnvloeden, waardoor gestandaardiseerde experimentele workflows essentieel zijn voor het genereren van betrouwbare en reproduceerbare resultaten. Het doel van het huidige protocol is om een praktische en reproduceerbare workflow te bieden voor het synchroniseren van gecultiveerde cellen, het uitvoeren van tijdreeksbemonstering en het analyseren van de expressie van circadiane klokgenen onder standaard laboratoriumomstandigheden. Het protocol beschrijft synchronisatie op basis van serumshock, versprongen monstername over 24–72 h om nachtelijke bemonstering te vermijden, extractie van ribonuclezuur, synthese van complementair deoxyribonuclezuur, kwantitatieve real-time polymerasekettingreactie en circadiane ritmeanalyse met behulp van geschikte statistische benaderingen. De workflow benadrukt daarnaast kritische experimentele overwegingen, waaronder synchronisatiecondities, beoordeling van monsterkwaliteit, selectie van referentiegenen en data-analyse, om de reproduceerbaarheid tussen experimenten te verbeteren. Deze methode biedt een toegankelijke aanpak voor het onderzoeken van moleculaire circadiane mechanismen en het evalueren van ritmische genexpressie in gecultiveerde cellen, wat studies naar circadiane regulatie in fysiologische en ziektegerelateerde experimentele modellen faciliteert.
Inleiding
Circadiane ritmes zijn endogene cycli met een periode van ongeveer 24 h die een breed scala aan fysiologische, metabole en cellulaire processen reguleren1. In zoogdiersystemen worden deze ritmes gecoördineerd door een centrale klok in de suprachiasmatische nucleus (SCN) van de hypothalamus en door zelfvoorzienende moleculaire klokken op cellulair niveau. Deze klokken bestaan uit in elkaar grijpende transcriptionele-translationele feedbackloops met betrokkenheid van kernklokgenen, waaronder circadian locomotor output cycles protein kaput (Clock), basic helix-loop-helix aryl hydrocarbon receptor nuclear translocase-like 1 (Bmal1), period (Per) en cryptochroom (Cry)2. Gezien de centrale rol van de circadiane klok in diverse biologische processen, zijn in vitro celmodellen belangrijke instrumenten geworden voor het onderzoeken van de moleculaire mechanismen van temporele regulatie onder gecontroleerde experimentele omstandigheden.
Het doel van het huidige protocol is om een betrouwbare, praktische en reproduceerbare workflow te bieden voor het synchroniseren van gecultiveerde cellen met behulp van een serumshock-protocol, het uitvoeren van versprongen tijdreeksbemonstering en het analyseren van de expressie van circadiane klokgenen, waarbij nachtelijke monstername wordt vermeden. Door de haalbaarheid van circadiane bemonstering te verbeteren zonder de datakwaliteit in gevaar te brengen, is deze workflow bedoeld om studies naar ritmische biologische processen met behulp van standaard laboratoriumtechnieken te faciliteren.
Circadiaanse studies zijn uitgevoerd in een breed scala aan in vitro modellen, waaronder menselijke kankercellijnen3, rat-1 fibroblasten4, SCN explantaten5 en organoïden6. Hoewel de meeste zoogdiercellen beschikken over functionele circadiane klokken, leidt de afwezigheid van synchroniserende signalen, zoals licht, in kweek snel tot desynchronisatie, wat het bestuderen van circadiane ritmes in vitro beperkt7. Daarom zijn synchronisatietechnieken essentieel voor het onderzoeken van moleculaire klokmechanismen en hun implicaties voor gezondheid en ziekte.
Er zijn verschillende synchronisatiestrategieën ontwikkeld voor gecultiveerde zoogdiercellen. Glucocorticoïd-gebaseerde synchronisatie met dexamethason behoort tot de meest gebruikte methoden, omdat het de circadiane ritmes in veel celtypen robuust reset en tegelijkertijd een deel van de variabiliteit die gepaard gaat met serumstimulatie vermindert8. Op soortgelijke wijze is forskoline-gemedieerde activering van cyclisch adenosinemonofosfaat-signalering succesvol toegepast om perifere klokken in geselecteerde cellulaire modellen te synchroniseren9. Andere benaderingen omvatten behandeling met bloedgedragen signalen4, verschillende chemische verbindingen8,10, mediumverversing3, temperatuurshock11, zuurstofcycli12 en mechanische stimulatie13. Gezamenlijk hebben deze methoden het circadiane onderzoek aanzienlijk vooruitgeholpen; zij kunnen echter gespecialiseerde apparatuur, specifieke experimentele omstandigheden of aanvullende optimalisatie vereisen, waardoor het belangrijk is om de gekozen synchronisatiestrategie te valideren voor elk biologisch model en elke experimentele toepassing14.
Serumshock is een van de meest algemeen erkende synchronisatiemethoden en bestaat uit het blootstellen van gecultiveerde cellen aan een kortstondige stimulus met een hoog serumgehalte4. Omdat de stimulus transiënt is, wordt langdurige verstoring van cellulaire signaleringspaden geminimaliseerd4, waardoor potentiële storende effecten op downstream-analyses worden verminderd. Bijgevolg is serumshock bijzonder geschikt voor studies naar circadiane genexpressie en de functie van de moleculaire klok. Bovendien is de procedure eenvoudig te implementeren en is er geen gespecialiseerde apparatuur voor nodig, waardoor deze toegankelijk is en gemakkelijk reproduceerbaar in verschillende laboratoria. Een praktische beperking van serumshock-experimenten is echter het intensieve bemonsteringsschema dat nodig is om de circadiane ritmiek nauwkeurig te karakteriseren. Betrouwbare ritmeanalyse vereist doorgaans monstername met regelmatige intervallen, meestal elke 2–6 h over één of meerdere circadiane cycli (24–72 h)14, wat vaak monstername gedurende de nacht noodzakelijk maakt.
De hier beschreven workflow pakt deze logistieke uitdaging aan door de start van de synchronisatie over meerdere kweekplaten te spreiden, waardoor volledige circadiane bemonstering tijdens standaard werktijden mogelijk is en nachtelijke monstername wordt vermeden. In plaats van een nieuwe synchronisatiestrategie te introduceren, biedt dit protocol een gedetailleerde en reproduceerbare implementatie van een gevestigde serumshock-methode, gecombineerd met een praktisch bemonsteringsschema en downstream genexpressieanalyse. Deze workflow is bijzonder geschikt voor studies naar circadiane genexpressie in gekweekte cellen met gebruikmaking van algemeen beschikbare laboratoriumtechnieken. Bij het aanpassen van het protocol aan aanvullende cellulaire modellen moeten experimentele parameters, waaronder celdichtheid, synchronisatiecondities, bemonsteringsintervallen en de selectie van referentiegenen, worden geoptimaliseerd en gevalideerd voor het specifieke celtype vóór implementatie.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Het volgende protocol beschrijft een gevalideerde synchronisatiemethode voor de mHypoE-42 embryonale muizenhypothalamus-cellijn. Valideer en optimaliseer het synchronisatieprotocol onafhankelijk voordat u dit toepast op andere gecultiveerde celtypen. Zie Figuur 1 voor een overzicht van de workflow en Aanvullende Figuur 1 voor het wekelijkse bemonsteringsschema. Raadpleeg de Tabel met Materialen voor alle reagentia, apparatuur en instrumenten die in dit protocol worden gebruikt. Voer alle celkweekprocedures uit in een gecertificeerde biosafety cabinet met behulp van steriele reagentia en apparatuur.
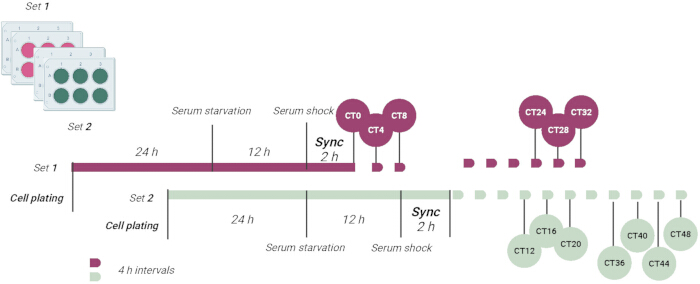
Figuur 1. Schematisch overzicht van het versprongen serumshock-synchronisatieprotocol. Schema dat de workflow illustreert die is gebruikt om mHypoE-42-cellen te synchroniseren via serumshock in twee versprongen experimentele sets. Het versprongen ontwerp maakt circadiane monsterafname tijdens standaard werktijden mogelijk, waardoor nachtelijke bemonstering wordt vermeden. De monsters worden vervolgens verwerkt voor RNA-extractie, kwantitatieve real-time polymerasekettereactie (qRT-PCR) en circadiane ritmeanalyse. Gemaakt met Biorender.com. Klik hier om een grotere versie van deze figuur te bekijken.
1. Celkweek
- Kweek adherente mHypoE-42-cellen in Dulbecco’s Modified Eagle Medium (DMEM), high glucose (4500 mg/L), aangevuld met 10% (v/v) hitte-geïnactiveerd foetaal runderserum (FBS), 3,7 g/L natriumbicarbonaat en 1% antibioticumoplossing.
- Houd de cellen op 37°C in een bevochtigde incubator met 95% lucht en 5% koolstofdioxide (CO2) gebruikmakend van T75-kweekflessen met een eindvolume van de kweek van 10 mL.
OPMERKING: Test elke nieuwe batch FBS voordat u met de experimenten begint, aangezien serumbatches kunnen variëren. - Subcultiveer de cellen wanneer ze ongeveer 80%–90% confluentie bereiken. Was de cellen met steriele 1× fosfaatgebufferde zoutoplossing (PBS; pH 7,4), voeg 3 mL van een 0,5% trypsine-oplossing toe en incubeer gedurende 3–5 min om de cellen los te maken.
- Voeg ten minste twee keer het volume van de trypsine aan volledig kweekmedium toe dat 10% (v/v) FBS bevat om de trypsine te neutraliseren.
- Verdun de cellen met vers groeimedium in een verhouding tot 1:2.
OPMERKING: Vermijd het gebruik van cellen die een overmatig aantal passages hebben ondergaan (bijv. passages hoger dan 40 voor mHypoE-42-cellen). Warm alle oplossingen voor gebruik voor. Test kweken regelmatig op mycoplasmacontaminatie. - Ga verder met de synchronisatie-assays 24 u na het uitplaten van de cellen tegen 2,0 × 10⁵ cellen per putje, zoals beschreven in Stap 2. Houd routineuze celkweken op ongeveer 80%–90% confluentie vóór het passeren.
2. Synchronisatie van de mHypoE-42-cellijn
- Celpreparatie
- Centrifugeer de cellen na trypsinisatie 5 min lang bij 700 × g .
- Verwijder het supernatant en resuspendeer de celpellet in 10 mL vers cultuurmedium.
- Meng de celsuspensie in een verhouding van 1:1 met trypaanblauw-kleurstof (totaal volume 20 μL) en bepaal de celconcentratie met een hemocytometer.
OPMERKING: Voer trypaanblauw-bevattende oplossingen af volgens de institutionele richtlijnen voor de verwijdering van chemisch afval. Gooi ongebruikte kleurstof niet in de gootsteen.
- Celuitplating en gespreid experimenteel ontwerp
- Plateer 2,0 × 10⁵ cellen per well in 6-wells platen of 35-mm kweekschalen. Incubeer de culturen 24 u bij 37°C.
OPMERKING: Start de serumsynchronisatie 24 u na het uitplaten van de cellen. Daarom is een vooraf gedefinieerde celconfluentie niet vereist vóór de synchronisatie. Controleer de culturen in plaats daarvan microscopisch om te bevestigen dat de cellen volledig zijn gehecht en de juiste morfologie vertonen voordat de synchronisatieprocedure wordt gestart. - Verdeel de kweekplaten willekeurig in twee experimentele sets. Gebruik de eerste set om de circadiane tijdspunten (CT) CT0, CT4, CT8, CT24, CT28 en CT32 te genereren. Gebruik de tweede set om CT12, CT16, CT20, CT36, CT40, CT44 en CT48 te genereren (Figuur 1; Aanvullende Figuur 1).
- Verhoog indien nodig het aantal wells of platen om technische replica's op te nemen.
OPMERKING: Minimaliseer variabiliteit door alle platen uit dezelfde celsuspensie te bereiden, identieke uitplaatdichtheden en kweekcondities te handhaven en de synchronisatie uit te voeren met dezelfde reagentia en experimentele instellingen. Pas het formaat van het kweekvat en de uitplaatdichtheid aan waar nodig voor andere celtypen. Combineer bij gebruik van 6-wells platen de CT's die gelijktijdig worden verzameld om het plaatgebruik te optimaliseren.
- Plateer 2,0 × 10⁵ cellen per well in 6-wells platen of 35-mm kweekschalen. Incubeer de culturen 24 u bij 37°C.
- Synchronisatie
- Aspireer na 24 u het medium uit de eerste set platen en voeg 1 mL serumvrij DMEM toe. Incubeer 12 u om serumuithongering te induceren.
- Bereid vlak voor gebruik een 50% (v/v) paardenserumoplossing in high-glucose DMEM.
- Aspireer het uithongeringsmedium uit de eerste set en stel de cellen 2 u lang bloot aan 1 mL van de vers bereide 50% paardenserumoplossing.
- Aspireer gelijktijdig het medium uit de tweede set platen en vervang dit door 1 mL serumvrij DMEM. Incubeer 12 u.
- Aspireer na de serumshock van 2 u het medium en voeg 1 mL high-glucose DMEM toe, aangevuld met 10% (v/v) hitte-inactiverd FBS. Definieer dit tijdstip als CT0.
- Monsterverzameling
- Plaats de kweekplaten op ijs. Aspireer het medium, was de cellen twee keer met 1 mL koude steriele 1× PBS, verwijder de wasoplossing en lyseer de cellen mechanisch met maximaal 1 mL lysisreagens.
WAARSCHUWING: Het lysisreagens bevat gevaarlijke chemicaliën. Voer alle handelingen uit in een gecertificeerde chemische zuurkast met het dragen van geschikte persoonlijke beschermingsmiddelen. Voer afval af volgens de institutionele richtlijnen voor chemische veiligheid. - Overbreng elk lysaat naar een steriele buis en bewaar de monsters bij −80°C tot aan de RNA-extractie.
- Herhaal stappen 2.4.1 en 2.4.2 om monsters te verzamelen bij CT4 en CT8.
- Herhaal bij CT8 stap 2.3.2 voor de tweede experimentele set om de overige cellen te synchroniseren.
- Beëindig na 2 u serumshock de synchronisatie van de tweede experimentele set door het medium te vervangen door 1 mL high-glucose DMEM, aangevuld met 10% (v/v) hitte-inactiverd FBS.
- Verzamel afwisselend monsters uit de twee experimentele sets om CT12, CT24, CT16, CT28, CT20 en CT32 te verkrijgen. Herhaal de volgende dag de verzamelprocedure om CT36, CT40, CT44 en CT48 te verkrijgen.
OPMERKING: Serumuithongering en synchronisatie werden gestart volgens de experimentele tijdlijn na het uitplaten van de cellen, in plaats van bij een vooraf gedefinieerde celconfluentie. Bevestig dat cellen volledig zijn gehecht en de juiste morfologie vertonen voordat de synchronisatie begint. Hoewel opeenvolgende CT's 4 u verschillen, worden de verzamelingen niet in intervallen van 4 u uitgevoerd. Raadpleeg Aanvullende Figuur 1 voor het volledige wekelijkse verzamelschema.
- Plaats de kweekplaten op ijs. Aspireer het medium, was de cellen twee keer met 1 mL koude steriele 1× PBS, verwijder de wasoplossing en lyseer de cellen mechanisch met maximaal 1 mL lysisreagens.
3. Monsterverwerking: RNA-extractie
OPMERKING: Protocollen kunnen variëren afhankelijk van de experimentele context en toepassing. De volgende workflow beschrijft een voorbeeld van een effectieve procedure voor RNA-extractie, synthese van complementair DNA (cDNA) en kwantitatieve real-time polymerasekettingreactie (qRT-PCR). Extraheer totaal RNA met behulp van een gecombineerde fenolgebaseerde lysis- en fasescheidingsmethode, gevolgd door zuivering met silica-spinzuilen.
- Monsterpreparatie en fasescheiding
- Ontdooi de monsters, homogeniseer de lysaten opnieuw en incubeer deze gedurende 5 min bij kamertemperatuur.
- Voeg 200 μL chloroform toe voor elke 1 mL lysereagens.
WAARSCHUWING: Chloroform is vluchtig en toxisch. Voer alle procedures met chloroform uit in een gecertificeerde chemische zuurkast terwijl u geschikte persoonlijke beschermingsmiddelen draagt. - Schud de buisjes krachtig gedurende 15 s en incubeer deze gedurende 3 min bij kamertemperatuur.
- Centrifugeer de monsters bij 12.000 × g gedurende 15 min bij 4°C. Laat de monsters scheiden in drie fasen: een onderste fenol-chloroformfase die eiwitten bevat, een witte interfase die DNA bevat, en een bovenste waterige fase die verrijkt is met RNA.
- Breng de waterige fase voorzichtig over naar een nieuw steriel buisje zonder de interfase te verstoren. Bewaar de organische fase bij 4°C als er later eiwit- of DNA-isolatie is gepland.
OPMERKING: Voer de eiwit- of DNA-isolatie uit volgens het betreffende protocol als deze biomoleculen uit de organische fase worden teruggewonnen.
- RNA-zuivering
- Voeg een gelijk volume 70% ethanol (bereid met RNase-vrij water) toe aan de waterige fase en vortexeer twee keer gedurende 15 s om de RNA-binding te bevorderen.
- Breng het monster over op een silica-spincolumn en zuiver het RNA volgens de workflow voor columnzuivering.
- Verteer contaminerende genomisch DNA met DNase gedurende 15 min bij kamertemperatuur.
- Was de column met de meegeleverde wasbuffers.
- Voer een extra wasbeurt uit met 100 μL wasbuffer en centrifugeer bij 11.000 × g gedurende 2 min om het silicamembraan te drogen.
- Breng de spincolumn over naar een schoon microcentrifugebuisje. Elueer het RNA met 40–60 μL RNase-vrij water door het water direct in het midden van het silicamembraan aan te brengen en te centrifugeren bij 11.000 × g gedurende 1 min.
OPMERKING: Kies het elutievolume op basis van de gewenste RNA-opbrengst en concentratie. Een elutievolume van 60 μL zorgt over het algemeen voor een vollediger RNA-terugwinning uit het silicamembraan, maar resulteert in een meer verdunde RNA-oplossing. Daarentegen levert een elutievolume van 40 μL een meer geconcentreerde RNA-preparatie op, maar kan dit de totale RNA-terugwinning verminderen. Optimaliseer het elutievolume volgens de aanbevelingen van de fabrikant en de vereisten van de downstream-applicatie.
- Kwaliteitsbeoordeling van RNA
- Plaats de RNA-monsters op ijs en breng 5 μL van elk monster over naar een nieuw steriel microcentrifugebuisje voor kwaliteitsbeoordeling.
- Evalueer de RNA-integriteit met behulp van 1,5% agarosegelelektroforese of capillairelektroforese. Bevestig de aanwezigheid van duidelijke 28S- en 18S-ribosomaal RNA-banden.
- Bepaal de RNA-concentratie en zuiverheid door de absorbentie te meten met een spectrofotometer.
OPMERKING: Voer fenolhoudend afval af volgens de institutionele richtlijnen voor de verwijdering van chemisch afval. Voer gevaarlijk chemisch afval niet af via de gootsteen. Voor monsters van gekweekte cellen liggen de RNA-concentraties doorgaans tussen 200 en 1000 ng/μL en zijn deze geschikt voor cDNA-synthese en qRT-PCR. Accepteer RNA-monsters met een A260/230-ratio tussen 2,0 en 2,2 en een A260/280-ratio van ongeveer 2,0 (zie Aanvullende Tabel 1).
- RNA-opslag
- Bewaar gezuiverde RNA-monsters bij −80°C tot aan de cDNA-synthese.
4. Monsterverwerking: cDNA-synthese
OPMERKING: Synthetiseer cDNA uit 1 μg totaal RNA met behulp van een first-strand cDNA-synthesekit. Pas de reactievolumes en incubatiecondities aan volgens de instructies van de fabrikant.
- Reverse transcriptie
- Ontdooi de RNA-monsters op ijs. Bereid een reverse transcriptie-reactie van 20 μL voor bestaande uit 1 μg totaal RNA, 10 μL 2× Master Mix (bevattende ribonuclease-remmer, random hexameren, oligo(deoxythymidine)-primers, magnesiumionen [Mg2+] en deoxynucleotidetrifosfaten), 2 μL enzymmix (bevattende reverse transcriptase) en met diethylpyrocarbonaat behandeld water tot een eindvolume van 20 μL.
- Incubeer de reactie in een thermocycler gedurende 10 min bij 25°C om de primers te laten annexeren, gevolgd door 30 min bij 50°C voor de cDNA-synthese. Inactiveer de reverse transcriptase door de reactie 5 min bij 85°C te incuberen.
- Voeg 1 μL RNase H toe en incubeer de reactie 20 min bij 37°C om de RNA-streng van het RNA-DNA-hybride af te breken.
- Verdun het cDNA-preparaat tot maximaal 1:20 met steriel water, afhankelijk van de vereisten voor assay-optimalisatie, en bewaar het verdunde cDNA bij −20°C tot aan de kwantitatieve real-time polymerasekettingreactie (qRT-PCR) analyse.
5. Monsterverwerking: Real-Time Kwantitatieve Polymerasekettingreactie (qRT-PCR)
OPMERKING: Meet de expressie van circadiane klokgenen met behulp van qRT-PCR. Raadpleeg Aanvullende Tabel 2 voor gevalideerde primersequenties, annealingtemperaturen en primerconcentraties.
- Optimalisatie van de assay
- Valideer en optimaliseer de primerconcentratie, de annealingtemperatuur en de cDNA-input met behulp van gepoolde cDNA-monsters en een standaardcurve voordat de experimentele monsters worden geanalyseerd. Voer de optimalisatie en validatie van de assay uit zoals eerder beschreven.15,16.
- Opstelling van de reactie
- Bereid elk voor 10 μL qRT-PCR-reactie door het combineren van 5 μL van 2× mastermix, 0.4 μL elk van de forward- en reverse-primers, 0.2 μL van met diethylpyrocarbonaat behandeld water, en 4 μL van cDNA-template in een 96-well PCR-plaat.
- Sluit de plaat af met een optisch transparante afdichtingsfolie of een afdichtingsmat. Centrifugeer de plaat bij 700 × g gedurende maximaal 5 min bij 4°C om bellen te verwijderen en het reactiemengsel onderin elke put te verzamelen.
- Analyseer alle cDNA-monsters om de expressie van de doelgenen te bepalen Bmal1 en Per2.
- Analyseer het geselecteerde referentiegen (B2m) waarbij dezelfde cDNA-verdunning wordt gebruikt om de genexpressie tussen monsters te normaliseren.
- Thermische cycli
- Voer qRT-PCR uit met de volgende cycluseigenschappen: initiële denaturatie en activering van de hot-start DNA-polymerase bij 95°C gedurende 2 min, gevolgd door 39 cycli van 95°C gedurende 5 s en 60°C gedurende 30 s.
- Voer een smeltcurveanalyse uit door de reacties te verhitten tot 95°C gedurende 5 s, gevolgd door incrementele verhogingen van 0.5°C naar 95°Cen houd dit gedurende 5 s bij elke stap vast.
OPMERKING: Pas de vasthoudtijden en de instellingen van de smeltcurve aan volgens de aanbevelingen voor de mastermix indien vereist.
- Validatie van referentiegenen
OPMERKING: Evalueer bij experimenten met serumsynchronisatie de kandidaat-referentiegenen, aangezien serumbehandeling de expressie van housekeeping-genen kan beïnvloeden17Beoordeel de expressiestabiliteit met behulp van methoden zoals BestKeeper18, geNorm19, NormFinder20, of de comparatieve ΔCt-methode21Selecteer het meest stabiele gen of de meest stabiele genen voor normalisatie. In deze studie, β-actine (Actb) en β-2-microglobuline (B2m) werden geëvalueerd met behulp van RefFinder-software22, waarin meerdere algoritmen voor de validatie van referentiegenen zijn geïntegreerd. B2m vertoonde de grootste expressiestabiliteit gedurende het circadiane tijdverloop en werd daarom geselecteerd voor normalisatie. - Productverificatie
- Verifieer de amplificatiespecificiteit door de PCR-producten te analyseren middels agarosegelelektroforese met een concentratie van 2%.
OPMERKING: Bepaal de optimale annealingstemperatuur door meerdere temperaturen te testen (bijv. 58 °C, 60°Cen 62°C). Selecteer de temperatuur die de laagste kwantificatiecyclus-waarde (Cq) oplevert, terwijl een enkele piek in de smeltcurve behouden blijft zonder aanwijzingen voor de vorming van primer-dimeren.
OPMERKING: Accepteer assays met amplificatie-efficiënties tussen 90% en 110% en een determinatiecoëfficiënt (R2) van 0,99 of hoger. Bevestig dat de smelttemperaturen niet meer dan 0.5°C tussen technische replica's. Accepteer voor analyse alleen technische replica's met een Cq-verschil van ≤0,5 en gebruik deze waarden om de gemiddelde expressieniveaus te berekenen. Voer alle reacties uit in technische replica's (bijv. triplicaten) en neem zowel een controle zonder template als een controle zonder reverse transcriptie op.
- Verifieer de amplificatiespecificiteit door de PCR-producten te analyseren middels agarosegelelektroforese met een concentratie van 2%.
6. Gegevensanalyse
- Genexpressieanalyse
- Bereken het gemiddelde van de technische replicates voor elk monster vóór de verdere analyse.
- Bereken de ΔCq-waarde voor elk monster en tijdstip met behulp van de volgende vergelijking:
ΔCq = Cqdoelgen - Cqhuishoudgen - Bereken de ΔΔCq-waarde voor elk monster en tijdstip met behulp van de volgende vergelijking:
ΔΔCq = ΔCqmonster - ΔCqcontrole
OPMERKING: Voor de berekening van ΔΔCq werd ΔCqcontrole gedefinieerd als de gemiddelde ΔCq-waarde verkregen door het middelen van alle controlemonsters over alle CT's. - Evalueer de circadiane parameters, waaronder de midline estimating statistic of rhythm (MESOR), amplitude, piek en fase, met behulp van CircaCompare23. Voer de analyse uit via de online applicatie of de R-package implementatie.
- Online CircaCompare-analyse
OPMERKING: De online implementatie rapporteert volledige circadiane parameterschattingen alleen wanneer de dataset voldoet aan de statistische criteria voor rhythmiciteit. Wanneer de rhythmiciteit zwak is of statistisch niet significant, gebruik dan de R-implementatie om parameterschattingen voor alle datasets te verkrijgen.- Maak een comma-separated values (.csv) bestand aan.
- Voer de tijdsvariabele (numeriek; uren) in kolom 1 in.
- Voer de groeperingsvariabele (slechts twee experimentele groepen) in kolom 2 in.
- Voer de uitkomstvariabele (numeriek; ΔΔCq) in kolom 3 in.
- Upload het .csv-bestand naar de online CircaCompare-applicatie.
- Wijs de tijd-, groep- en uitkomstvariabelen toe aan de overeenkomstige kolommen.
- Selecteer Run om de analyse uit te voeren.
- Maak een comma-separated values (.csv) bestand aan.
- CircaCompare-analyse in R
- Voer de analyse uit met R versie 4.5.1 en CircaCompare package versie 0.2.024.
- Installeer de vereiste R-packages.
- Installeer het devtools package (versie 2.5.2).
- Installeer het circacompare package (versie 0.2.0).
- Installeer het ggplot2 package (versie 4.0.3).
- Installeer het svglite package (versie 2.2.2).
- Upload het input .csv-bestand.
- Voer de CircaCompare-analyse uit na het instellen van alpha_threshold = 1.
OPMERKING: Door alpha_threshold = 1 in te stellen, worden circadiane parameterschattingen gerapporteerd voor alle gefitte oscillaties, ongeacht de statistische significantie. Echter, alleen oscillaties met een p-waarde < 0,05 mogen als rytmisch en statistisch significant worden geïnterpreteerd. - Pas Aanvullend Bestand 1 aan voordat u het script uitvoert.
- Vervang “XXX.csv” door de naam van het inputdatabestand.
- Vervang “YYY.csv” door de gewenste naam van het resultatenbestand.
- Vervang “ZZZ.svg” door de gewenste naam van het plotbestand.
- Pas de limieten van de y-as (ylim) en eventuele aanvullende plotparameters aan op basis van de dataset.
- Raadpleeg Aanvullende Tabel 3 voor een voorbeeld van een inputbestand.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Een succesvolle synchronisatie wordt aangetoond door statistisch significante circadiane ritmiek van de geanalyseerde klokgenen onder de controleconditie (p < 0,05). In deze studie werden drie onafhankelijke biologische experimenten uitgevoerd, waarbij 0,1% dimethylsulfoxide diende als negatieve controle. Bmal1 en Per2 werden geselecteerd als representatieve circadiane markers omdat zij kerncomponenten zijn van de moleculaire circadiane klok en een goed gekarakteriseerd antiphasisch expressi...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Circadiaanse ritmes zijn endogene cycli van ongeveer 24 h die een breed scala aan fysiologische, metabole en cellulaire processen reguleren via geconserveerde moleculaire klokmechanismen1,2. In vitro synchronisatiemodellen bieden een gecontroleerde experimentele omgeving voor het onderzoek naar deze mechanismen en zijn waardevolle instrumenten geworden voor het bestuderen van circadiane regulatie onder normale en pathologische omstandigheden, inclusief b...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs verklaren dat er geen belangenverstrengeling is.
Dankbetuigingen
Dit werk werd medegefinancierd door het Herstel- en Veerkrachtfaciliteit van de Europese Unie (EU) en Portugese nationale middelen via FCT – Fundação para a Ciência e a Tecnologia onder projecten LA/P/0058/2020 (DOI: 10.54499/LA/P/0058/2020), UID/04539/2025, UID/PRR/04539/2025 (DOI: 10.54499/UID/PRR/04539/2025), en UID/PRR2/04539/2025 (DOI: 10.54499/UID/PRR2/04539/2025); door het Europees Fonds voor Regionale Ontwikkeling (EFRO) via het Regionaal Operationeel Programma Centro 2030 onder project CENTRO2030-FEDER-02360200; en door Portugese nationale middelen via FCT onder beurzen 2023.17896.ICDT (DOI: 10.54499/2023.17896.ICDT), 2023.12355.PEX (DOI: 10.54499/2023.12355.PEX), 2021.02220.CEECIND/CP1656/CT0008 (DOI: 10.54499/2021.02220.CEECIND/CP1656/CT0008), 2020.04850.BD (DOI: 10.54499/2020.04850.BD), en 2021.05334.BD (DOI: 10.54499/2021.05334.BD).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| celkweekplaat met 6 wells | Nest Biotechnology | 15140122 | Celkweekplaat |
| Agarose | NZYtech | MB02702 | Beoordeling van de RNA-kwaliteit |
| Antibioticamengsel (penicilline/streptomycine) | Gibco, Thermo Fisher Scientific | D5648 | Celcultuursupplement |
| cDNA-synthesekit (eerste streng) | NZYtech | MB12502 | Reverse transcriptie |
| Chloroform | Sigma-Aldrich | A5256701 | Fasescheidingsreagens |
| DMEM, hoge glucoseconcentratie (4500 mg/L glucose, L-glutamine) | Sigma-Aldrich | 26050088 | Celcultuurmedium |
| Eppendorf microcentrifugebuisjes | Eppendorf | 30120086 | Bewaring van monsters |
| Ethanol (96%) | Fisher Bioreagents | 15552393 | RNA-zuivering |
| Fetaal runderserum, hitte-inactivering | Gibco, Thermo Fisher Scientific | J62692.K7 | Celcultuursupplement |
| Hard-shell PCR-plaat met 96 wells | Bio-Rad Laboratories | HSP9601 | qRT-PCR-plaat |
| Paardenserum, hitte-geïnactiveerd | Gibco, Thermo Fisher Scientific | 15400054 | Serumshock-synchronisatie |
| mHypoE-42 cellijn (CVCL_D443) | CELLutions Biosystems Inc. | MB13402 | Embryonale muis hypothalamuscellijn |
| Oligonucleotide-primers | NZYtech | MB12501 | qRT-PCR-primers |
| Fosfaatgebufferde zoutoplossing (PBS) | Thermo Fisher Scientific | MB18502 | Celwassing |
| qPCR Green Master Mix (2×) | NZYtech | MB22403 | qRT-PCR-reagens |
| Real-time PCR-detectiesysteem | Bio-Rad Laboratories | EP0030108116 | qRT-PCR-apparaat |
| RNA-isolatiekit | NZYtech | 288306 | Zuivering via silica-spincolommen |
| RNA-lyse-reagens | NZYtech | MB18502 | Fenolgebaseerd RNA-extractiereagens |
| Natriumbicarbonaat | Sigma-Aldrich | MB22401 | Supplement voor celkweekmedium |
| Steriele 35-mm kweekschaal | Thermo Fisher Scientific | 121V | Celcultuurschaal |
| T100 thermocycler | Bio-Rad Laboratories | 1861096 | cDNA-synthese |
| T75 weefselkweekfles | Corning | 430641U | Celkweekvat |
| Trypanblauwoplossing (0,4%) | Gibco, Thermo Fisher Scientific | 15250061 | Celtelling |
| Trypsine-EDTA (0,5%) | Gibco, Thermo Fisher Scientific | 15400054 | Cel-dissociatie |
Referenties
- Fuhr L, Abreu M, Pett P, Relógio A. Circadian systems biology: When time matters. Comput Struct Biotechnol J. 2015;13:417-426.
- Albrecht U. Timing to perfection: The biology of central and peripheral circadian clocks. Neuron. 2012;74(2):246-260.
- Relógio A, et al. Ras-mediated deregulation of the circadian clock in cancer. PLoS Genet. 2014;10(5):e1004338.
- Balsalobre A, Damiola F, Schibler U. A serum shock induces circadian gene expression in mammalian tissue culture cells. Cell. 1998;93(6):929-937.
- Hughes ATL, et al. Constant light enhances synchrony among circadian clock cells and promotes behavioral rhythms in VPAC2-signaling deficient mice. Sci Rep. 2015;5:12092.
- Fuhr L, et al. The circadian clock regulates metabolic phenotype rewiring via HKDC1 and modulates tumor progression and drug response in colorectal cancer. EBioMedicine. 2018;33:105-121.
- Nagoshi E, et al. Circadian gene expression in individual fibroblasts: Cell-autonomous and self-sustained oscillators pass time to daughter cells. Cell. 2004;119(5):693-705.
- Balsalobre A, et al. Resetting of circadian time in peripheral tissues by glucocorticoid signaling. Science. 2000;289(5488):2344-2347.
- Kaneko H, Kaitsuka T, Tomizawa K. Response to stimulations inducing circadian rhythm in human induced pluripotent stem cells. Cells. 2020;9(3):732.
- Chalmers JA, et al. Vascular circadian rhythms in a mouse vascular smooth muscle cell line (Movas-1). Am J Physiol Regul Integr Comp Physiol. 2008;295:R1529-R1538.
- Brown SA, et al. Rhythms of mammalian body temperature can sustain peripheral circadian clocks. Curr Biol. 2002;12(18):1574-1583.
- Adamovich Y, et al. Rhythmic oxygen levels reset circadian clocks through HIF1α. Cell Metab. 2017;25(1):93-101.
- Rogers EH, et al. Comparing circadian dynamics in primary derived stem cells from different sources of human adult tissue. Stem Cells Int. 2017;2017:2057168.
- Gaspar LS, et al. The importance of determining circadian parameters in pharmacological studies. Br J Pharmacol. 2019;176(16):2827-2847.
- Nolan T, Hands RE, Bustin SA. Quantification of mRNA using real-time RT-PCR. Nat Protoc. 2006;1(3):1559-1582.
- Derveaux S, Vandesompele J, Hellemans J. How to do successful gene expression analysis using real-time PCR. Methods. 2010;50(4):227-230.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2−ΔΔCT method. Methods. 2001;25(4):402-408.
- Pfaffl MW, Tichopad A, Prgomet C, Neuvians TP. Determination of stable housekeeping genes, differentially regulated target genes and sample integrity: BestKeeper—Excel-based tool using pair-wise correlations. Biotechnol Lett. 2004;26(6):509-515.
- Vandesompele J, et al. Accurate normalization of real-time quantitative RT-PCR data by geometric averaging of multiple internal control genes. Genome Biol. 2002;3(7):research0034.1-research0034.11.
- Andersen CL, Jensen JL, Ørntoft TF. Normalization of real-time quantitative reverse transcription-PCR data: a model-based variance estimation approach to identify genes suited for normalization. Cancer Res. 2004;64(15):5245–5250.
- Silver N, Best S, Jiang J, Thein SL. Selection of housekeeping genes for gene expression studies in human reticulocytes using real-time PCR. BMC Mol Biol. 2006;7:33.
- Xie F, Wang J, Zhang B. RefFinder: a web-based tool for comprehensively analyzing and identifying reference genes. Funct Integr Genomics. 2023;23:125.
- Parsons R, Garner N, Oster H, Rawashdeh O. CircaCompare: A method to estimate and statistically support differences in mesor, amplitude and phase between circadian rhythms. Bioinformatics. 2020;36(4):1208-1212.
- Parsons R. circacompare: Analyses of circadian data. R package version 0.2.0. 2021. Available at: https://CRAN.R-project.org/package=circacompare
- Di Nisio A, et al. Impairment of human dopaminergic neurons at different developmental stages by perfluoro-octanoic acid (PFOA) and differential human brain areas accumulation of perfluoroalkyl chemicals. Environ Int. 2022;158:106982.
- Xiang S, et al. Oscillation of clock and clock-controlled genes induced by serum shock in human breast epithelial and breast cancer cells: Regulation by melatonin. Breast Cancer (Auckl). 2012;6:155-168.
- Chang HC, Guarente L. SIRT1 mediates central circadian control in the SCN by a mechanism that decays with aging. Cell. 2013;153(7):1448-1460.
- Yoo SH, et al. PERIOD2::LUCIFERASE real-time reporting of circadian dynamics reveals persistent circadian oscillations in mouse peripheral tissues. Proc Natl Acad Sci U S A. 2004;101(15):5339-5346.
- Ueda HR, et al. System-level identification of transcriptional circuits underlying mammalian circadian clocks. Nat Genet. 2005;37(2):187-192.
- Beaulé C, Granados-Fuentes D, Marpegan L, Herzog ED. In vitro circadian rhythms: Imaging and electrophysiology. Essays Biochem. 2011;49(1):103-117.
- Ribeiro RFN, et al. Circadian rhythms are disrupted in patients and preclinical models of Machado-Joseph disease. Brain. 2025;148(11):4127-4142.
- Masri S, Sassone-Corsi P. The emerging link between cancer, metabolism, and circadian rhythms. Nat Med. 2018;24(12):1795-1803.
- Ribeiro RFN, Cavadas C, Silva MMC. Small-molecule modulators of the circadian clock: Pharmacological potentials in circadian-related diseases. Drug Discov Today. 2021;26(7):1620-1641.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar