We beschrijven confocale beeldvormings- en volgpijplijnen toegepast op twee rapportagestrategieën: mozaïekorganoïden voor het oplossen van individueel celgedrag en lotsreporterorganoïden voor het monitoren van celtypeovergangen in menselijke en muis-intestinale organoïden.
Methodenartikel
Levende-cel beeldvorming en single-cel tracking om klonale dynamiek en lotsovergangen in menselijke en muisachtige intestinale organoïden te monitoren
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Het intestinale epitheel ondergaat een snelle zelfvernieuwing door stamceldeling, celdifferentiatie en migratie. Begrijpen hoe individuele cellen zich aan specifieke lotsbestemmingen verbinden en hoe klonale dynamiek binnen dit weefsel ontstaat, vereist methoden die cellulair gedrag in realtime en met enkelcelresolutie vastleggen. Intestinale organoïden recapituleren belangrijke kenmerken van epitheliale zelforganisatie en celtypediversiteit, waardoor ze een krachtig systeem zijn om deze processen in een gecontroleerde omgeving te bestuderen. Hier presenteren we een protocol voor langdurige confocale live-celbeeldvorming (tot 72 uur) en enkelceltracking in menselijke en muis-intestinale organoïden, opgebouwd rond twee complementaire verslaggeverstrategieën. Eerst beschrijven we de generatie van mozaïekorganoïden door differentieel gelabelde celpopulaties te combineren, waardoor enkelcelresolutie van membraangelokaliseerde en cytoskeletale reporters mogelijk is die anders niet aan individuele cellen in een dicht epitheel kunnen worden toegeschreven. Ten tweede gebruiken we celtype-specifieke lotsverslaggevers (MUC2 voor gobletcellen en DEFA5 voor Paneth-cellen) om secretorische celtypeovergangen in realtime te monitoren. Het protocol omvat organoïdecultuur, mozaïekvorming van organoïden, monstervoorbereiding met strategieën om fototoxiciteit te minimaliseren, beeldverwerving over meerdere dagen, en semi-geautomatiseerde single-cell tracking met behulp van OrganoidTracker, die celtrajecten en lijnen in de loop van de tijd reconstrueert. Hoewel aangetoond in intestinale organoïden, is dit raamwerk gemakkelijk aan te passen aan andere epitheelorganoïde systemen, waaronder gastrische, alvleesklier- en colonische modellen, wat het nut ervan vergroot voor studies naar epitheelbiologie, homeostase en ziekte.
Inleiding
Het darmepitheel is een van de snelst zelfvernieuwende weefsels in het lichaam, waarbij de meeste cellen binnen drie tot vijf dagen worden vervangen. Deze continue omzet wordt in stand gehouden door Leucine-rijke, herhaaldelijke, G-eiwitgekoppelde receptor 5 (Lgr5)-positieve stamcellen die zich aan de basis van intestinale crypten bevinden, en die voortbrengen tot transit-amplificerende voorlopers die differentiëren tot de gespecialiseerde celtypen van het darmslijmvlies terwijl ze migreren naar de villuspunt1. De belangrijkste gedifferentieerde lijnen omvatten absorptieve enterocyten, slijmafscheidende bekercellen, hormoonproducerende entero-endocriene cellen en antimicrobiële Paneth-cellen2. Hoe individuele cellen zich aan specifieke lotsbestemmingen verbinden, hoe collectief celgedrag voortkomt uit individuele celdynamiek en hoe coördinatie op weefselniveau wordt bereikt, blijven fundamentele vragen in de darmbiologie. Het beantwoorden van deze vragen vereist experimentele benaderingen die cellulair gedrag vastleggen op enkelcelresolutie, in realtime en over tijdschalen die relevant zijn voor differentiatie en migratie3.
Intestinale organoïden, driedimensionale (3D) zelforganiserende structuren gekweekt uit enkele stamcellen of weefselfragmenten, herhalen belangrijke aspecten van epitheelarchitectuur, zelforganisatie en celtypediversiteit 4,5,6. Sinds hun ontwikkeling zijn organoïden een onmisbaar hulpmiddel geworden voor het bestuderen van darmbiologie, ziektemodellering en medicijnreacties. Zowel muriene als menselijke intestinale organoïden kunnen langdurig in cultuur worden onderhouden, genetisch gemodificeerd met behulp van Clustered Regularly Interspaced Short Palindromic Repeats (CRISPR)-gebaseerde benaderingen, en gecombineerd tot mozaïekstructuren door gedissocieerde individuele cellen van verschillende genotypen of rapportageachtergronden te mengen voordat ze opnieuw worden ingebed in basale membraanextract 7,8,9. Mozaïekorganoïden combineren cellen met verschillende genetische of fluorescerende achtergronden binnen één structuur, zodat de populaties identieke nichesignalen en mechanische context ervaren en kunnen worden vergeleken met ingebouwde interne controles. Deze genetische tractabiliteit maakt ze bijzonder geschikt voor live beeldvormingsstudies die nauwkeurige labeling van specifieke celpopulatiesvereisen. Verslaggevers die sporadisch cellen labelen, zoals celtype-specifieke lotsmarkers, produceren geïsoleerde fluorescerende cellen die afzonderlijk kunnen worden getraceerd en geanalyseerd via single-cell trackingmethoden. Er ontstaat echter een aanhoudende uitdaging wanneer membraangelokaliseerde en cytoskeletale eiwitten, zoals celverbindingen of corticale Myosine-II, uniform gelabeld zijn over het epitheel. Hun signalen kunnen niet aan individuele cellen worden toegekend omdat naburige cellen hun grenzen delen bij de resolutie van confocale microscopie. Mozaïekorganoïden overwinnen deze beperking: wanneer een cel die een fluorescerende reporter uitdrukt omringd is door niet-gelabelde buren, kunnen het membraan en cytoskeletsignalen ondubbelzinnig aan die enkele cel worden toegeschreven, wat onthult hoe het zijn cytoskelet herstructureert tijdens migratie, deling of extrusie 9,13. Het aanpassen van de labelverhouding keert dit beeld om, waardoor de buurtrespons rond een niet-gelabelde cel in plaats daarvan kan worden vastgelegd. Histone H2B nucleaire reporters zoals H2B-mCherry of H2B-iRFP dienen als hulpmiddelen om het mozaïekpatroon te identificeren en informatieve celconstellaties te lokaliseren voor analyse. Naast enkelcelresolutie maken mozaïekorganoïden ook directe fitnessvergelijkingen tussen genotypen mogelijk: omdat beide populaties dezelfde niche hebben, leveren verschillen in cellevensduur of extrusiesnelheid een intern gecontroleerde uitdata van competitieve fitness 9,14,15.
Live-celbeeldvorming van organoïden brengt echter specifieke technische uitdagingen met zich mee. Hun 3D-geometrie vereist confocale of lichtplaatmicroscopie voor optische doorsnijding 16,17,18,19. Het vastleggen van langzame processen zoals differentiatie en migratie vereist beeldingstijden van 24 uur of langer, met zorgvuldige optimalisatie van laservermogen, belichtingstijd en beeldingsintervallen om fototoxiciteit16,18 te beperken. De inbeddingsmatrix en kweekmedium moeten de gezondheid van organoïden ondersteunen en tegelijkertijd compatibel blijven met de optica van de microscoop. Bovendien vereist het extraheren van kwantitatieve single-cel informatie uit dichte 3D-timelapse-datasets speciale computationele tools om cellen over honderden tijdstippen te detecteren en te koppelen. Naast confocale microscopie en lichtbladmicroscopie bieden multifotonmicroscopie en fluorescentie-levenslange beeldvormingsmicroscopie (FLIM) extra mogelijkheden zoals verminderde fototoxiciteit en labelvrije metabole uitlezingen20,21, hoewel confocale microscopie het meest toegankelijke en veelzijdige platform blijft voor multi-color live imaging van fluorescentie-gelabelde organoïden.
Er zijn verschillende benaderingen ontwikkeld voor het volgen van cellen in organoïden, variërend van handmatige annotatie tot semi-geautomatiseerde en volledig geautomatiseerde deep learning-gebaseerde pijplijnen22. OrganoidTracker is een semi-geautomatiseerde softwaretool die neurale netwerken gebruikt om kernen in 3D-confocale stacks te detecteren en detecties over tijdstippen heen koppelt om celtrajecten en stamboombomen te reconstrueren 3,23. Het is gevalideerd voor het volgen van honderden cellen over meerdere dagen in intestinale organoïden en biedt een flexibel kader voor het kwantificeren van celdeling, migratie, differentiatie en extrusiegebeurtenissen. De ondersteuning voor multikanaals beeldvorming maakt het direct compatibel met zowel mozaïekorganoïden met spectraal onderscheidende nucleaire reporters als organoïden die celtype-specifieke lotsmarkers uitdrukken.
In dit protocol beschrijven we een modulaire workflow die confocale live-celbeeldvorming en single-cell tracking integreert met twee complementaire rapportagestrategieën in menselijke en muisinale intestinale organoïden. De eerste strategie gebruikt mozaïek-muriene organoïden die worden gegenereerd door het mengen van twee celpopulaties met verschillende H2B-nucleaire reporters (H2B-mCherry en H2B-iRFP) in gedefinieerde verhoudingen (Figuur 1A). Een populatie draagt bovendien een co-expressieve reporter van belang, zoals Myosin-II-mNeonGreen, wiens membraangelokaliseerde signaal ondubbelzinnig kan worden toegeschreven aan individuele cellen wanneer ze omringd zijn door buren met slechts het tweede nucleaire label. Dit maakt directe observatie mogelijk van hoe een enkele cel zijn cytoskelet herstructureert tijdens migratie, deling of extrusie binnen een verder intact weefsel. De tweede strategie gebruikt celtype-specifieke lotsreporters in menselijke darmorganoïden, Mucin 2 (MUC2) om bekercellen te labelen en Defensin Alpha 5 (DEFA5) om Paneth-cellen te labelen, waardoor realtime monitoring van secretoire celtypeovergangen mogelijk is (Figuur 1B). Samen illustreren deze twee systemen hoe een gedeelde beeldvormings- en trackingpijplijn kan worden aangepast aan diverse biologische vraagstukken, simpelweg door de verslaggeverstrategie te wisselen (Figuur 1C,D). De volgende secties bevatten alle stappen die nodig zijn om deze workflow te implementeren, van organoïdecultuur tot mozaïekgeneratie, beeldverwerving en kwantitatieve single-cell analyse.
Protocol
Alle experimenten met dieren werden uitgevoerd in overeenstemming met institutionele richtlijnen goedgekeurd door het Centraal Comité voor Dierproeven (CCD) van de Nederlandse overheid en het KNAW/Hubrecht Instituut Dierenwelzijnsorgaan (IvD). Menselijke intestinale organoïden werden gegenereerd uit patiëntweefsel dat werd verkregen in het Universitair Medisch Centrum Utrecht (UMCU) met geïnformeerde patiënttoestemming. De studie werd goedgekeurd door de UMCU ethische commissie (Utrecht, Nederland) en uitgevoerd in overeenstemming met de Verklaring van Helsinki en de Nederlandse wet.
1. Organoïdekweek en onderhoud
- Bereid Epidermale groeifactor, Noggin en R-spondin (ENR) groeimedium voor muis-intestinale organoïden (Tabel 1).
- Bereid expansiemedium voor (Tabel 2), patroonmedium (Tabel 3) en rijpingsmedium (Tabel 4) voor menselijke darmorganoïden.
- Ontdooi een flesje met groeifactor-gereduceerd basamentmembraanextract (BME) op ijs voor gebruik.
- Houd BME altijd op ijs om voortijdige gelatie te voorkomen.
- Kweek muisintestinale organoïden in ENR-medium ingebed in BME, waarbij elke 7 dagen wordt gepasseerd met een 1:4 tot 1:8 splitsingsverhouding door mechanische dissociatie4.
- Kweek menselijke darmorganoïden in Expansion Medium ingebed in BME, waarbij elke 7–10 dagen wordt gepasseerd5.
OPMERKING: Voor expansie of herstel van muisorganoïden na eencel-dissociatie, kweek in ENR-medium aangevuld met Wnt-geconditioneerd medium (aangevuld met 10 mM nicotinamide en 10 μM Y-27632 dihydrochloride) gedurende de eerste 2–3 dagen om de uitgroei en levensvatbaarheid van organoïden te bevorderen. - Om differentiatie van menselijke intestinale organoïden te induceren, kweek organoïden achtereenvolgens in het patroonmedium gedurende 14 dagen, gevolgd door het rijpingsmedium gedurende 7–10 dagen6.
OPMERKING: Voor gedetailleerde protocollen voor de vestiging en kweek van organoïden, zie Sato et al.4 voor muis-intestinale organoïden, Sato et al.5 en He et al.6 voor menselijke intestinale organoïden.
2. Generatie van transgene intestinale organoïden
- Passage organoïden om actief te vermenigvuldigen culturen op het moment van elektroporatie: drie dagen voor elektroporatie voor muisorganoïden en vijf tot zeven dagen voor menselijke organoïden. Voor elke elektroporatiereactie worden organoïden gebruikt uit 4–8 putten van een 24-put plaat (ongeveer 200–400 μL BME-bevattende organoïden, wat ongeveer 500–1.000 organoïden oplevert). Dissocieer organoïden naar enkele cellen met behulp van recombinant, trypsine-achtige dissociatiereagens gedurende 5–10 minuten bij 37 °C.
- Genereer nucleaire reporter-organoïde lijnen door een transposon-gebaseerde expressieconstructie (p2T-H2B-mCherry-IRES-BlastR of p2T-H2B-iRFP-IRES-PuroR; 5 μg elk) samen met een transposasevector (p2T-CAG-mT2TP; 5 μg) in de gedissocieerde cellen te elektroporeren met behulp van een elektroporatiesysteem volgens vastgestelde protocollen24.
OPMERKING: De hoeveelheden plasmide-DNA die in stap 2.2 zijn gespecificeerd (5 μg per construct) zijn geoptimaliseerd voor ongeveer 500–1.000 organoïden per elektroporatiereactie. Controleer tijdens elektroporatie dat de impedantie die door de elektroporator wordt gemeten binnen 25–55 Ω ligt. Impedantie onder 25 Ω duidt op een overmatige celdichtheid of problemen met de buffergeleiding; Impedantie boven 55 Ω duidt op onvoldoende aantal cellen of slechte levensvatbaarheid van de cel. Pas de celconcentratie aan of vervang de elektroporatiebuffer als de impedantie buiten dit bereik valt. - Na elektroporatie werden kweekcellen in Wnt-geconditioneerd medium aangevuld met 10 μM Y-27632 dihydrochloride gedurende 3 dagen ter ondersteuning van celherstel en organoïde reformatie.
- Begin een week na elektroporatie met de selectie van antibiotica voor overexpressie-constructen (puromycine (2 μg/mL) voor H2B-iRFP-lijnen of blasticidine (10 μg/mL) voor H2B-mCherry-lijnen) om voldoende herstel vóór selectiedruk mogelijk te maken.
- Houd de selectie gedurende twee weken continu aan.
- Kies fluorescerende organoïde klonen onder een stereomicroscoop met epifluorescentie-uitrusting met geschikte filtersets.
- Dissocieer geselecteerde klonen naar enkele cellen met behulp van recombinant trypsin-achtige dissociatie-reagens en zet uit in een Wnt-geconditioneerd medium gedurende twee weken voordat je overgaat naar ENR-medium.
- Valideer rapportagelijnen door uniforme nucleaire lokalisatie van het fluorescerende signaal en stabiele expressie over passages te bevestigen.
- Controleer dat de introductie van de verslaggever de groeisnelheid, morfologie of differentiatiecapaciteit van organoïden niet verandert door te vergelijken met niet-gelabelde ouderlijnen.
- Om uitlezingen van membraangelokaliseerde of cytoskeletale eiwitten mogelijk te maken, co-expresse een fluorescerende reporter van belang (bijv. Myosine-II getagd met mNeonGreen) in dezelfde organoïdelijn als de H2B-nucleaire reporter.
OPMERKING: Gevestigde H2B-reporter-organoïde lijnen kunnen worden uitgebreid en gecryopserveerd. Deze lijnen dienen als een veelzijdige basislijn voor downstream mozaïekexperimenten: extra reporters of genetische mutaties kunnen in dezelfde H2B-gelabelde achtergrond worden geïntroduceerd, waardoor een bibliotheek van lijnen wordt gegenereerd die compatibel is met de mozaïekworkflow beschreven in Sectie 4.
3. Generatie van endogene lotsrapportage menselijke darmorganoïden
- Genereer de MUC2 fluorescerende knock-in reporter in menselijke intestinale organoïden met behulp van CRISPR-gemedieerde homologie-onafhankelijke gerichte integratie (CRISPR-HOT) zoals beschreven in Artegiani et al.7
- Genereer de DEFA5 fluorescerende knock-in reporter in menselijke darmorganoïden door homologiegerichte reparatie (HDR) zoals beschreven in He et al.6
OPMERKING: CRISPR-HOT (stap 3.1) en HDR (stap 3.2) produceren endogene knock-in verslaggevers. - Valideer beide rapportageexpressie door co-lokalisatie van fluorescerende signalen met antistofkleuring voor respectievelijk MUC2 en DEFA5 te bevestigen.
- Controleer of de introductie van de reporter de groei, morfologie of differentiatiecapaciteit van organoïden niet verandert.
OPMERKING: De CRISPR-HOT-benadering is breed toepasbaar buiten de lotsmarkers en kan worden gebruikt om endogene fluorescerende reporters te genereren voor membraangelokaliseerde en cytoskeletale eiwitten zoals Myosine-II, E-cadherine of ZO-1 in zowel menselijke als muisorganoïden.
4. Generatie van mozaïekorganoïden
- Drie dagen voor de vorming van mozaïekorganoïden moet beide organoïde lijnen worden doorgevoerd in een Wnt-geconditioneerd medium om de groei van stamcellen te bevorderen en de levensvatbaarheid van de cel tijdens dissociatie te maximaliseren.
- Op de dag van mozaïekgeneratie wordt elke put van een plaat met 48 putten bedekt met 20 μL van 5% BME in DMEM om een dunne kleeflaag te creëren voor celhechting. Broeden 1 uur op 37 °C.
- Los de BME op door ijskoud basismedium toe te voegen en verzamel organoïden van elke lijn afzonderlijk door centrifugatie op 300 × g gedurende 5 minuten bij 4 °C. Dissocieer organoïden tot individuele cellen door 5–7 minuten in een waterbad bij 37 °C te incuberen in een enzymatische celloskoppelingsoplossing. Pipetteer herhaaldelijk de ophanging met een P1000-pipet om mechanische dissociatie te bevorderen. Monitor dissociatie onder een brightfield-microscoop en stop de reactie door overtollig ijskoud basismedium toe te voegen wanneer voornamelijk enkele cellen of kleine organoïde fragmenten van 2–10 cellen zichtbaar zijn.
- Pelletcellen door centrifugatie bij 300 × g gedurende 5 minuten bij 4 °C. OPTIONEEL: Filter elke celsuspensie door een 40 μm celzeef om resterende klonten, cellulair afval en BME-gelfragmenten te verwijderen.
OPMERKING: Dit zorgt voor een schone celsuspensie, verbetert de homogeniteit van het mozaïek en vermindert het risico op grote klonale plekken die ontstaan uit voorgevormde celclusters. Om grotere grenzen tussen celpopulaties te creëren, wordt filtering niet aanbevolen. - Beoordeel de levensvatbaarheid van cellen en tel levensvatbare cellen met behulp van trypan blue exclusion. Combineer de twee celpopulaties in de gewenste verhouding (bijv. 1:1, 1:3 of 1:9) tot in totaal 300.000 cellen in 500 μL Wnt-geconditioneerd medium, aangevuld met 10 μM Y-27632 dihydrochloride. Meng grondig door zacht te pipetten.
OPMERKING: De mengverhouding bepaalt het type analyse: een lage reporter-tot-niet-gelabelde verhouding (bijv. 1:9) isoleert individuele gelabelde cellen onder niet-gelabelde buren, waardoor membraan- en cytoskeletsignalen ondubbelzinnig aan afzonderlijke cellen kunnen worden toegeschreven. Een hoog aandeel van de reportercellen (bijvoorbeeld 9:1) keert dit beeld om, waardoor de buurtrespons rond een niet-gelabelde cel kan worden vastgelegd. - Zaad de celsuspensie in de gecoate 48-well-plaat. Centrifugeer de plaat op 200 × g gedurende 5 minuten bij kamertemperatuur en incubeer bij 37 °C.
- Na 24 uur wordt de cellaag mechanisch losgemaakt door te schrapen met een P200-pipettip en grondig door te spoelen met ijskoud basismedium of met een celschraper. Verzamel de losgekomen aggregaten door centrifugatie bij 300 × g gedurende 3 minuten bij 4 °C zonder extra mechanische afschuiving. Resuspendeer aggregaten in BME en plaat tot beeldvormingscompatibele monsterdragers. Cultuur in ENR-medium.
OPMERKING: De 2D-aggregatiestap zonder BME is cruciaal voor het genereren van goed gemengde mozaïekorganoïden met een zout-en-peper verdeling van de twee celpopulaties. - Voor menselijke mozaïekorganoïden vervang Wnt-geconditioneerd medium en ENR door het menselijke expansiemedium (Tabel 2); Alle andere stappen blijven ongewijzigd.
5. Monstervoorbereiding voor confocale live-cel beeldvorming
- Gebruik glasbodem-beeldkamers (bijv. 24-put glas-bodemplaat met high-performance #1,5 borosilicaat coverslip) om optische compatibiliteit te waarborgen met hoge numerieke apertuur (NA) confocale objectieven.
- Plaat de organoïde-BME-suspensie als een dunne koepel (≤30 μL per put) nabij het midden van de glazen bodem. Voordat je het overbrengt naar 37 °C, incubeer je de plaat bij 4 °C gedurende 5–10 minuten zodat organoïden door de zwaartekracht naar de glasbodem kunnen zakken voorafgaand aan de BME-gelatie.
OPMERKING: Dit verkleint de werkafstand tussen de organoïde en de dekmantel, waardoor de beeldkwaliteit met omgekeerde microscopen wordt gemaximaliseerd. - Overzetten naar 37 °C en laat de BME 20–30 minuten stollen. Voeg dan 500 μL voorverwarmd groeimedium per 24-put toe. Laat organoïden herstellen en hun morfologie minstens 24 uur na het plateren vaststellen voordat live imaging begint.
- Om verdamping tijdens langdurige beeldvorming te minimaliseren, gebruik je een bevochtigde incubatiekamer bovenaan het podium. Plaats het monster 1–2 uur voor de beeldvorming op de microscoopfase om thermische evenwicht mogelijk te maken en Z-drift tijdens de opname te minimaliseren.
- Zorg ervoor dat de incubator op de bovenkant 37 °C en 5% CO₂ gedurende de hele beeldvorming behoudt.
- Selecteer organoïden dicht bij de glazen bodem (≤50 μm vanaf het dekmantelblad) met gezonde morfologie: duidelijke crypt-knoppende architectuur voor muisorganoïden of cystische/knoppende structuur voor menselijke organoïden. Vermijd organoïden die diep in de BME zijn geplaatst, omdat de signaalkwaliteit en volgnauwkeurigheid aanzienlijk verslechteren met de beeldvormingsdiepte.
OPMERKING: De aanwezigheid van fenolrood in zowel het BME als het kweekmedium veroorzaakt geen significante autofluorescentie- of beeldvormingsartefacten, aangezien de fluorescerende reporters die in dit protocol worden gebruikt (H2B-mCherry, H2B-iRFP, MUC2-mNeonGreen en DEFA5-dsRed) voldoende signaal-ruisverhouding produceren voor betrouwbare nucleaire detectie en enkelceltracking. Voor experimenten met zwakkere reporters of extra fluorescentiekanalen kan overschakelen naar fenolroodvrije BME en kweekmedium echter gunstig zijn.
6. Confocale beeldverwerving
- Gebruik een laser-scannende confocale microscoop uitgerust met een stage-top incubator (37 °C, 5% CO₂), gemotoriseerde Z-drive en laserlijnen die geschikt zijn voor de gebruikte fluoroforen.
- Kies het doel op basis van de experimentele vereiste. Gebruik het 40×/1.10 NA waterimmersie-objectief met een werkafstand van 0,62 mm om dieper in de BME te beelden. Gebruik het 20×/0,75 NA luchtobjectief met een werkafstand van 0,62 mm voor multi-organoïde of groot gezichtsveld.
OPMERKING: Een hogere NA verbetert lichtopvang, resolutie en optische doorsnede, waardoor het 40×/1,10 wateronderdompelingsobjectief fijne details dieper in de BME oplost, terwijl de hogere vergroting het veld beperkt tot één of enkele organoïden. Het 20×/0,75 luchtobjectief verzamelt minder licht en secties minder dicht, maar het bredere veld vangt veel organoïden in één enkele acquisitie, waardoor het de betere keuze is voor populatieschaal of multi-positie beeldvorming. - Laat het monster en het immersiemedium thermisch in evenwicht zijn op de microscooptrap gedurende minstens 1–2 uur voordat de verwerving wordt gestart (stap 5.8).
- Controleer de focus op alle posities tijdens de eerste paar tijdspunten en corrigeer handmatig alle posities die drift tonen voordat het zich ophoopt.
OPMERKING: Verlies van focus en beelddrift zijn veelvoorkomende uitdagingen bij langdurige confocale acquisities en moeten actief worden beheerd. Voor wateronderdompelingsdoelen gebruik je een dompelolie met een brekingsindex die is afgestemd op water (n = 1,333) in plaats van water zelf, waardoor verdamping wordt geëlimineerd terwijl de optische eigenschappen van wateronderdompeling behouden blijven. - Stel excitatie- en emissie-instellingen in voor elke fluorofor. Om cross-bleed te minimaliseren, verkrijg je fluorescentiekanalen sequentieel in plaats van gelijktijdig, zodat er slechts één laserlijn tegelijk actief is. Gebruik bidirectionele sequentiële scanning om de totale acquisitietijd per tijdstip te verkorten terwijl kanaalafstand behouden blijft.
OPMERKING: Neem enkelkleurige controleorganoïden op die slechts één reporter uitdrukken om residuele cross-bleed te kwantificeren en spectrale ontmengingscorrecties toe te passen indien nodig. - Voor tweekleurige muismozaïekorganoïden gebruik 561 nm excitatie voor H2B-mCherry en 638 nm voor H2B-iRFP670 met geschikte emissiefilters om spectrale doorbloeding te minimaliseren. Voor de menselijke darmorganoïden gebruik je 488 nm excitatie voor MUC2-mNeonGreen en 561 nm voor DEFA5-dsRed.
OPMERKING: Levende nucleaire kleurstoffen zoals Hoechst 33342 of een ver-rood fluorescerend DNA-kleurstof kunnen een genetische nucleaire marker vervangen, omdat de detectiepijplijn werkt op een nucleair signaal in plaats van op een specifieke fluorofoor. Let op dat DNA-bindende kleurstoffen fototoxisch en antiproliferatief kunnen worden bij herhaald belichten, met name Hoechst, dat een ~400 nm excitatie heeft, dus houd de concentraties laag en geef de voorkeur aan verre rode kleurstoffen met lage fototoxiciteit voor langdurige live beeldvorming. - Stel de Z-stack in als 25–35 optische secties met intervallen van 2 μm. Stel het tijdsinterval in op 5–10 minuten voor muis-intestinale organoïden en 15–30 minuten voor menselijke organoïden.
OPMERKING: Voor betrouwbare nucleaire detectie met OrganoidTracker raden we de volgende instellingen aan als uitgangspunt: 40x waterobjectief, scansnelheid 600 Hz, zoomfactor 0,75×, wat resulteert in een pixelgrootte van 0,38 μm in XY. Deze instellingen bieden voldoende ruimtelijke bemonstering om individuele kernen te onderscheiden, terwijl de verwervingstijd per z-stack binnen acceptabele grenzen blijft voor langetermijnbeeldvorming met meerdere posities. - Houd het laservermogen zo laag mogelijk, maar verhoog totdat de kernen duidelijk zijn opgelost. Begin met de multi-position time-lapse acquisitie. Zorg ervoor dat de totale acquisitietijd per tijdstip over alle posities 90% van het ingestelde tijdinterval niet overschrijdt om aanpassingen van toneelbeweging en autofocus mogelijk te maken. Afbeelding voor 12–72 uur, afhankelijk van de biologische vragen.
OPMERKING: Voordat je aan een lange OrganoidTracker-run begint, verzamel je één z-stack en test je de identificatie. Betrouwbare identificatie met weinig gemiste of valse detecties bevestigt dat de instellingen adequaat zijn. Anders pas je het laservermogen, de detectorversterking of z-stap aan voordat je verder gaat. Het vastleggen van differentiatiegebeurtenissen zoals het ontstaan van MUC2-positieve bekercellen of DEFA5-positieve Paneth-cellen vereist doorgaans 48–72 uur. Kortetermijndynamiek zoals celextrusie kan binnen 12–24 uur worden vastgelegd. Fototoxiciteit is de belangrijkste beperkende factor voor langdurige beeldvorming. Tekenen zijn onder andere vertraagde celdeling, apoptose, nucleaire condensatie en organoïde collapse (Figuur 2). Het wordt aanbevolen om niet-afgebeelde controleorganoïden als interne referentie op te nemen. Indien waargenomen, verminder het laservermogen of verleng het tijdsinterval.
7. Single-cell tracking en afstammingsreconstructie met behulp van een semi-geautomatiseerde organoïdecel-tracking softwaretool zoals OrganoidTracker
- Installeer OrganoidTracker volgens de instructies op https://github.com/jvzonlab/OrganoidTracker.
OPMERKING: De software vereist Python 3.8 of later met numpy, scipy, matplotlib en tensorflow. - Laad de time-lapse dataset in OrganoidTracker. Geaccepteerde bestandsformaten zijn onder andere TIFF-stacks, ND2 en LIF. Voer de op het neurale netwerk gebaseerde kerndetectie uit op het nucleaire kanaal (H2B-mCherry of H2B-iRFP voor muisorganoïden).
OPMERKING: Het vooraf getrainde model dat bij de software wordt geleverd, is geoptimaliseerd voor H2B-gelabelde intestinale organoïde kernen en kan niet direct worden toegepast om automatisch MUC2-mNeonGreen- of DEFA5-dsRood-positieve cellen te identificeren. - Beoordeel en corrigeer handmatig geautomatiseerde detecties, met de nadruk op valse positieven (detecties op puin, autofluorescerend materiaal of dubbel geteld mitotische cijfers), vals-negatieven (gemiste kernen in dichte gebieden of aan de organoïde periferie) en identiteitswisselingen (onjuiste celidentiteitstoewijzingen wanneer twee cellen dicht bij elkaar passeren).
- Voer het koppelingsalgoritme uit om detecties over tijdspunten heen te verbinden en celtrajecten te reconstrueren. Bekijk links handmatig, met speciale aandacht voor celdelingsgebeurtenissen (één spoor splitst in twee dochtersporen) en celextrusiegebeurtenissen (spoorbeëindiging wanneer een cel het epitheel verlaat).
OPMERKING: Voor mozaïekorganoïden voer detectie en tracking uit op het primaire nucleaire kanaal, en classificeer vervolgens elke getraceerde cel als behorend tot populatie A of B op basis van de fluorescentieintensiteitsverhouding tussen de twee kernkanalen. - Gebruik de optie "Handmatige Tracking" in de software om de organoïden van de Human Fate Reporter te volgen. Kwantificeer de referentuurfluorescentie door de gemiddelde signaalintensiteit binnen een gedefinieerde ROI rond de celcentrumpositie te meten die tijdens handmatige tracking wordt ingebracht. Het tijdstip waarop de intensiteit van de verslaggever een bepaalde drempel overschrijdt, markeert de toewijding aan het lot. Het begin van het MUC2-mNeonGreen-signaal definieert de toewijding van de goblet cell, terwijl het begin van het DEFA5-dsRed-signaal de Paneth-celcommitment definieert.
- Sla het trackingproject regelmatig op met behulp van de incrementele opslagfunctie van de software, waarmee het correctieproces kan worden gepauzeerd en hervat. Exporteer trackinggegevens (inclusief celposities, stamboombomen en celclassificaties) voor downstream analyse in Python of R.
8. Kwantificering van cellotsovergangen en gedrag van enkele cel
- Om celtypeovergangen te kwantificeren, identificeer je het tijdstip waarop elke DEFA5-dsRed-negatieve cel voor het eerst DEFA5-dsRed-positief wordt (Paneth-celcommitment) op basis van de kanaalintensiteit van de melder in de tracking. Voor elke gevolgde cel wordt de fluorescentieintensiteit van zowel de MUC2-mNeonGreen als DEFA5-dsRed kanalen over de tijd extraherend om de temporele relatie tussen de twee verslaggevers te monitoren. Plot dual-channel intensiteitssporen voor individuele cellen om gecorreleerde meldingsdynamiek te identificeren.
OPMERKING: Het gelijktijdig monitoren van beide kanalen in individuele gevolgde cellen is essentieel om het onderscheid te maken tussen gobletcel-commitment (aanhoudende MUC2-mNeonGreen-activatie) en Panath-celcommitment (tijdelijke MUC2-mNeonGreen-activatie gevolgd door DEFA5-dsRed-aanvang). Single-channel analyse alleen is onvoldoende om deze dynamiek vast te leggen en kan leiden tot een verkeerde classificatie van vroege Paneth-celvoorlopers als gobletcellen. - In mozaïekorganoïden worden per cel gedragsmetingen voor elke gevolgde cel geëxtraheerd, waaronder cellevensduur (tijd van laatste deling tot extrusie of einde van beeldvorming), delingssnelheid en migratiesnelheid. Waar een mede-uitgedrukte verslaggever van belang aanwezig is, kwantificeer dan de fluorescentieintensiteit over de tijd om dynamische veranderingen tijdens specifieke gebeurtenissen zoals deling, migratie of extrusie vast te leggen. Relatere deze metingen aan de lokale buurtcontext van de cel door het gedrag van de gelabelde cel te vergelijken met zijn directe niet-gelabelde buren.
OPMERKING: Wanneer twee genotypen in hetzelfde organoïde worden gemengd, kunnen systematische verschillen in een van deze metrics tussen de twee populaties wijzen op een concurrentievoordeel in fitness van het ene genotype ten opzichte van het andere. - Voer statistische analyses uit met behulp van geschikte tests. Om het tijdstip van lotsbinding of per-cel metrieken zoals levensduur, migratiesnelheid en delingssnelheid tussen twee groepen te vergelijken, gebruik je de Mann-Whitney U-test. Voor het vergelijken van de intensiteitsdynamiek van reporters over de tijd, gebruik een lineair gemengd-effectenmodel om herhaalde metingen binnen dezelfde cel te verwerken.
OPMERKING: Alle kwantificaties moeten worden uitgevoerd op handmatig gecorrigeerde trackinggegevens. Ongecorrigeerde of gedeeltelijk gecorrigeerde datasets introduceren systematische fouten in de timing van lotsbinding, ruimtelijke toewijzingen en berekeningen van gedragsmetriek. Reserveer voldoende tijd voor handmatige correctie voordat je doorgaat met kwantificering (zie Sectie 7).
Resultaten
Volgens het protocol beschreven in Sectie 4 vormen mozaïekorganoïden met H2B-mCherry- en H2B-iRFP-gelabelde celpopulaties binnen 48 uur na het zaaien. Succesvolle mozaïekvorming wordt gekenmerkt door een zout-en-peper verspreiding of gedefinieerde grenzen tussen de twee populaties, afhankelijk van de mate van dissociatie die wordt gebruikt. Een zout-en-peper-verdeling verwijst naar een willekeurige, enkelcelige vermenging van de twee populaties, waarbij cellen van elke populatie op enkelcelniveau worden verspreid, zonder grote klonale domeinen. Gedefinieerde grenzen daarentegen resulteren in coherente patches van elke celpopulatie binnen hetzelfde organoïde. De mate van celverspreiding wordt bepaald door de duur van de dissociatiestap en de kracht van het pipetten: grondige enkelcel-dissociatie produceert zout-en-pepermozaïeken, terwijl zachte fragmentatie kleine klonale clusters bewaart (Figuur 3A).
De mozaïeklabeling maakt single-cel-analyse mogelijk van processen die niet kunnen worden opgelost in uniform gelabelde weefsels. Wanneer een individuele cel die een reporter van belang co-expressie geeft (bijvoorbeeld een fluorescerende Myosine-II-reporter) wordt omringd door niet-gelabelde buren, kan de cytoskeletdynamiek tijdens migratie, deling of extrusie ondubbelzinnig aan die cel worden toegeschreven (Figuur 3B). Nucleaire H2B-reporters faciliteren de identificatie van informatieve celconstellaties binnen het mozaïek, en metingen per cel, zoals levensduur, delingssnelheid en intensiteitsdynamiek van de melder, kunnen uit de trackinggegevens worden gehaald (Figuur 3C). Wanneer twee genotypen worden gemengd, kunnen deze per-cel metrieken worden vergeleken tussen populaties om verschillen in competitieve fitheid te beoordelen.
Bij menselijke darmorganoïden met de MUC2-mNeonGreen en DEFA5-dsRed lotsverslaggevers is secretorische cellotsbinding duidelijk zichtbaar als een geleidelijke toename van de fluorescentie van de verslaggevers over dagen. Organoïden die in het rijpingsmedium werden gekweekt, werden op dag 7 overgebracht naar glazen platen en gefotografeerd met confocale levende-cel microscopie (Figuur 4A). Time-lapse beeldvorming toont twee verschillende rapportagedynamiek: gobletcellen activeren en behouden een hoge MUC2-mNeonGreen-expressie gedurende de beeldvormingsperiode, terwijl Paneth-cellen de initiële activatie van MUC2-mNeonGreen vertonen, gevolgd door progressieve signaalafname en daaropvolgende DEFA5-dsRed-activatie6 (Figuur 4A). Kwantificatie van enkelcellen bevestigt deze sequentiële overgang op het niveau van individuele cellen (Figuur 4B), wat suggereert dat Paneth-celcommitment verloopt via een transiënte MUC2-expressieve tussentoestand in plaats van rechtstreeks van een ongelabelde voorloper. Gemiddelde intensiteitscurves over meerdere gevolgde cellen bevestigen dat dit patroon consistent is op populatieniveau, waarbij Paneth-celprecursors een karakteristieke omgekeerde relatie vertonen tussen MUC2-mNeonGreen en DEFA5-dsRed signalen (Figuur 4C). Samen tonen deze gegevens aan dat het duale meldersysteem verschillende secretorische lotstrajecten oplost bij enkelcelresolutie.
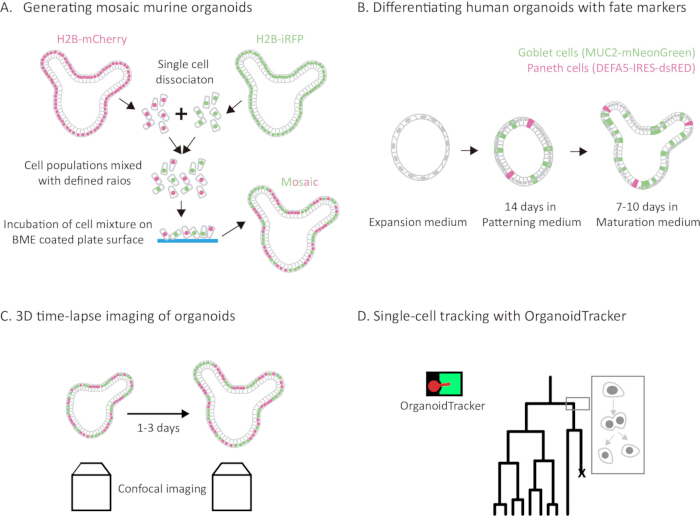
Figuur 1: De workflow die confocale live-celbeeldvorming en single-cel tracking integreert met twee complementaire rapportagestrategieën in menselijke en muisintestinale organoïden. (A) Schematisch overzicht van de mozaïek-organoïdegeneratieworkflow. Murine intestinale organoïden die H2B-mCherry (magenta) of H2B-iRFP (groen) tot expressie brengen, worden gedissocieerd in enkele cellen, gemengd in gedefinieerde verhoudingen en op een met BME gecoate plaat gezaaid voor 24 uur aggregatevorming voordat ze opnieuw worden ingebed in BME. (B) Schematisch overzicht van differentiatie van menselijke intestinale organoïden. Menselijke organoïden die MUC2-mNeonGreen (gobletcellen, groen) en DEFA5-dsRed (Paneth-cellen, magenta) endogene knock-in reporters tot expressie brengen, worden gedifferentieerd met behulp van een tweestapsprotocol. Organoïden worden eerst 14 dagen in het patroonmedium gekweekt, gevolgd door het rijpingsmedium gedurende 7–10 dagen. Tijdens differentiatie gaan organoïden over van een cystische, bolvormige morfologie naar een uitgebreid gebudde structuur die belangrijke darmceltypen herbergt, waaronder MUC2-mNeonGreen-positieve bekercellen en DEFA5-dsRed-positieve Panath-cellen. (C) 3D timelapse confocale beeldvorming van een muismozaïek intestinale organoïde die nucleaire reporters uitdrukt. (D) Enkelceltracking en stamlijnreconstructie met behulp van een semi-geautomatiseerde organoïdecel-trackingsoftwaretool. Gedetecteerde kernen zijn over tijdspunten verbonden om celtrajecten en stamboombomen te reconstrueren, waardoor celdeling, migratie en extrusiegebeurtenissen worden gekwantificeerd. Klik hier om een grotere versie van deze figuur te bekijken.
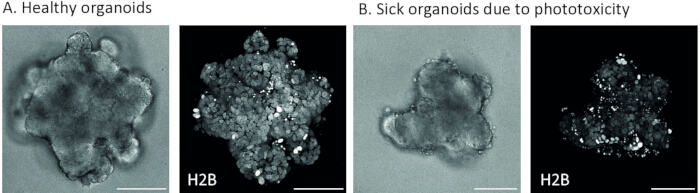
Figuur 2: Vergelijking van gezonde en fototoxische menselijke darmorganoïden tijdens live confocale beeldvorming. (A) Representatieve brightfield- en fluorescentiebeelden van een gezond menselijk darmorganoïde. Gezonde organoïden vertonen duidelijke cystische of knopvormende morfologie zonder celresten in het omliggende medium. (B) Representatieve brightfield- en fluorescentiebeelden van een menselijk darmorganoïde met fototoxische schade. Tekenen van fototoxiciteit zijn onder andere ophoping van celresten in het omliggende medium, nucleaire condensatie en gestopte celdeling. H2B-mCherry fluorescentiebeelden worden weergegeven als maximale intensiteitsprojecties. Schaalbalken, 100 μm. Klik hier om een grotere versie van deze figuur te bekijken.
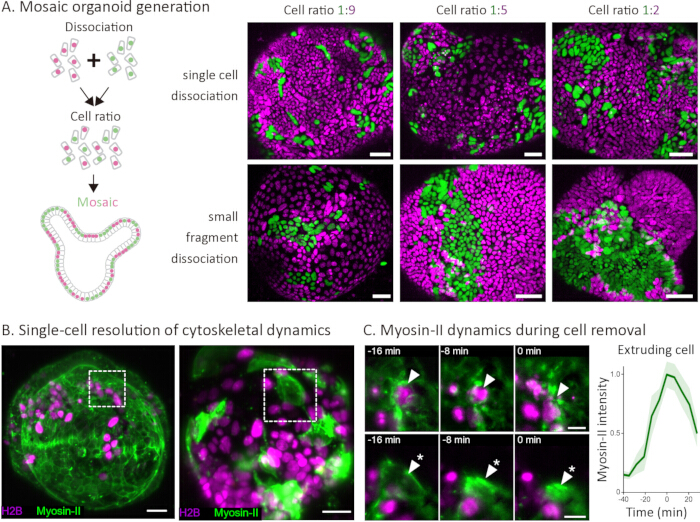
Figuur 3: Mozaïek-organoïde generatie en enkelcelresolutie van cytoskeletale dynamiek in muis-intestinale organoïden. (A) Schema van mozaïek-organoïde generatie door dissociatie, menging in gedefinieerde verhoudingen en heraggregatie. Representatieve confocale beelden van mozaïekorganoïden gegenereerd bij celverhoudingen van 1:9, 1:5 en 1:2 (H2B-mCherry, groen; H2B-iRFP, magenta) met enkelcel-dissociatie (bovenste rij) of klein-fragment dissociatie (onderste rij). Single-cell dissociatie veroorzaakt een zout-en-peper mengpatroon, terwijl small-fragment dissociatie resulteert in grotere klonale patches. Schaalbalken, 50 μm. (B) Confocale beelden van mozaïekorganoïden waarin een dichte (links) of dun (rechts) populatie Myosine-II-mNeonGreen (groen) uitdrukt, terwijl de andere populatie alleen H2B-iRFP (magenta) uitdrukt. Gestreepte vakjes geven de regio's aan die in (C) zijn vergroot. Schaalbalken, 20 μm. (C) Time-lapse serie die celextrusie toont met 8 minuten intervallen, uitgelijnd op het moment van celverwijdering (t = 0 min). Bovenste rij (pijlpunten): extrusie van een niet-gelabelde cel omringd door Myosin-II-mNeonGreen-expressieve buren, die de buurtreactie onthult. Onderste rij (asterisken): extrusie van een individuele Myosine-II-mNeonGreen-expressieve cel omringd door niet-gelabelde buren, waardoor de corticale myosinedynamiek ondubbelzinnig aan de extruderende cel wordt toegeschreven. Schaalbalken, 10 μm. Rechts: genormaliseerde Myosine-II-mNeonGreen fluorescentieintensiteit over tijd voor extruderende cellen, uitgelijnd met het moment van celverwijdering (t = 0 min). Myosine-II hoopt zich geleidelijk op in de minuten voorafgaand aan de extrusie, met een piek bij de verwijdering. Schaduwgebied duidt op standaarddeviatie. Klik hier om een grotere versie van deze figuur te bekijken.
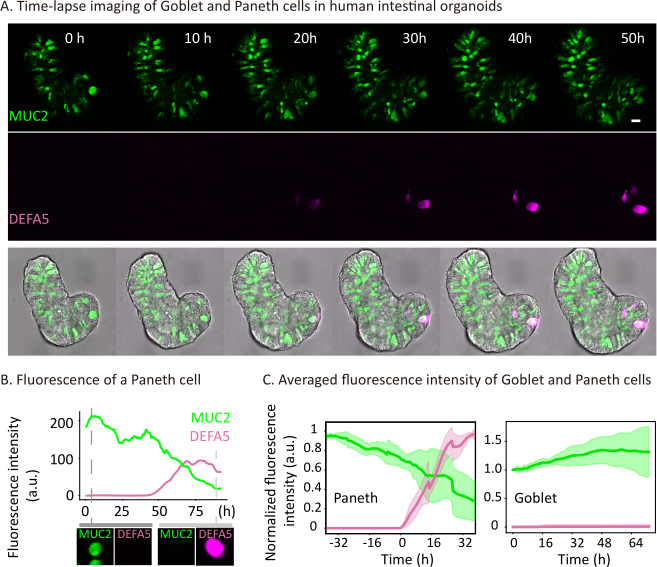
Figuur 4: Realtime monitoring van secretorische cellotsovergangen in menselijke darmorganoïden met behulp van MUC2-mNeonGreen en DEFA5-dsRed fate reporters. Klik hier om een grotere versie van deze figuur te bekijken.
(A) Representatieve time-lapse confocale beelden van een menselijk darmorganoïde, gekweekt in het rijpingsmedium en vanaf dag 7 van de rijping opgenomen. MUC2-mNeonGreen (groen) markeert bekercellen en DEFA5-dsRed (magenta) markeert Paneth-cellen. Schaalbalk, 20 μm. (B) Enkelcel-kwantificering van MUC2-mNeonGreen (groen) en DEFA5-dsRed (magenta) fluorescentieintensiteit over tijd voor een representatieve Paneth-cel, met initiële activatie van MUC2-mNeonGreen gevolgd door progressieve signaalafname en het daaropvolgende DEFA5-dsRed-begin. Fluorescentieintensiteit wordt weergegeven in willekeurige eenheden (a.u.). (C) Gemiddelde fluorescentie-intensiteitscurves voor gobletcellen (n = 7 cellen) en Paneth-celprecursors (n = 8 cellen) die MUC2-mNeonGreen (groen) en DEFA5-dsRed (magenta) signaaldynamiek over tijd6 tonen. Voor Paneth-celvoorlopers wordt de tijd uitgelijnd met het eerste verschijnen van het DEFA5-dsRed-signaal (t = 0 h). Kelkcellen behouden gedurende de tijd een consequent hoge MUC2-mNeonGreen-intensiteit, terwijl Paneth-celvoorlopers een karakteristieke omgekeerde relatie vertonen tussen MUC2-mNeonGreen en DEFA5-dsRed signalen. Schaduwrijke gebieden duiden op standaarddeviatie.
| Component | Voorraadconcentratie | Eindconcentratie |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | Basismedium | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| N2-supplement | 100x | 1x |
| B27-supplement | 50x | 1x |
| N-acetylcysteïne | 500mM | 1mM |
| Penicilline/Streptomycine | 10000U/ml, 10000ug/ml | 100U/ml, 100ug/ml |
| Recombinante muisachtige EGF | 50ng/ml | |
| Recombinante muis Noggin | 100ng/ml | |
| Recombinant menselijke R-spondin 1 | 500ng/ml |
Tabel 1: Groeimedium voor muis-intestinale organoïden.
| Component | Voorraadconcentratie | Eindconcentratie |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | Basismedium | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| B27-supplement | 50x | 1x |
| Penicilline/Streptomycine | 10000U/ml, 10000ug/ml | 100U/ml, 100ug/ml |
| Primocine | 50 mg/ml | 100ug/ml |
| R-spondine geconditioneerd medium (U-Eiwitexpressie) | 2% | |
| Noggin geconditioneerd medium (U-Protein Express) | 2% | |
| N-acetylcysteïne | 500mM | 1mM |
| Nicotinamide | 1M | 10mM |
| Menselijke recombinante EGF | 500ug/ml | 50ng/ml |
| A83-01 | 5mM | 500nM |
| SB202190 (p38-remmer) | 30mM | 3uM |
| Prostaglandine E2 | 10mM | 1uM |
| Wnt-surrogaat | 1000x |
Tabel 2: Expansiemedium voor menselijke darmorganoïden.
| Component | Voorraadconcentratie | Eindconcentratie |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | Basismedium | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| B27-supplement | 50x | 1x |
| Penicilline/Streptomycine | 10000U/ml, 10000ug/ml | 100U/ml, 100ug/ml |
| Primocine | 50 mg/ml | 100ug/ml |
| R-spondine geconditioneerd medium (U-Eiwitexpressie) | 2% | |
| Noggin geconditioneerd medium (U-Protein Express) | 2% | |
| N-acetylcysteïne | 500mM | 1mM |
| Menselijke recombinante EGF | 500ug/ml | 50ng/ml |
| A83-01 | 5mM | 500nM |
| Wnt-surrogaat | 1000x | |
| CHIR99021 | 3mM | 3uM |
| Recombinant Mens IL-22 | 10 ug/ml | 2ng/ml |
Tabel 3: Patroonmedium voor menselijke darmorganoïden.
| Component | Voorraadconcentratie | Eindconcentratie |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | Basismedium | |
| HEPES | 1M | 10mM |
| Glutamax | 200mM | 2mM |
| B27-supplement | 50x | 1x |
| Penicilline/Streptomycine | 10000U/ml, 10000U/ml | 100U/ml, 100U/ml |
| Primocine | 50 mg/ml | 100ug/ml |
| R-spondine geconditioneerd medium (U-Eiwitexpressie) | 2% | |
| Noggin geconditioneerd medium (U-Protein Express) | 2% | |
| N-acetylcysteïne | 500mM | 1mM |
| Menselijke recombinante EGF | 500ug/ml | 50ng/ml |
| A83-01 | 5mM | 500nM |
| Wnt-surrogaat | 30000x | |
| Recombinant Mens IL-22 | 10 ug/ml | 2ng/ml |
Tabel 4: Rijpingsmedium voor menselijke intestinale organoïden.
Discussie
Dit protocol biedt een stapsgewijze workflow voor live-cel confocale beeldvorming en single-cel tracking in menselijke en muis-intestinale organoïden, opgebouwd rond twee complementaire experimentele systemen: mozaïekorganoïden die individueel celgedrag binnen een dicht epitheel onderscheiden, en fate reporter-organoïden die MUC2-mNeonGreen en DEFA5-dsRed tot expressie brengen voor het in realtime monitoren van secretorische celtype-overgangen.
In vergelijking met methoden met vaste tijdspunten zoals immunofluorescentie of single-cell RNA-sequencing, legt live imaging de dynamiek van overgangen vast in plaats van snapshots. In vergelijking met Cre-gebaseerde afstammingstracering biedt het de temporele oplossing om individuele lotsbeslissingen te identificeren. De mozaïekbenadering voegt intern gecontroleerde vergelijkingen toe binnen dezelfde weefselcontext, waardoor verwarrende variabiliteit tussen organoïden wordt vermeden.
Verschillende stappen in het protocol zijn cruciaal voor succes. Voor een mozaïek met zout-en-peper verdeling moet dissociatie van organoïden naar enkele cellen grondig maar zacht zijn: onvolledige dissociatie produceert grote klonale plekken, terwijl overmatige dissociatie de levensvatbaarheid vermindert (Sectie 4.3). De 24 uur durende aggregatiestap op een vlak oppervlak vóór herinbedding in BME is noodzakelijk voor een juiste menging van de twee populaties; het weglaten ervan resulteert in slecht geïntegreerde mozaïeken (sectie 4.6–4.8). Fototoxiciteitsbeheer tijdens beeldvorming vereist zorgvuldige kalibratie, beginnend met conservatieve laserinstellingen en alleen opbouwend als de volgsoftware overmatige vals-negatieve resultaten produceert (Sectie 6.8).
De belangrijkste beperkingen hebben betrekking op de inherente beperkingen van organoïdesystemen en live imaging. Organoïden missen stromale, vasculaire en immuuncomponenten die celgedrag in vivo kunnen beïnvloeden. Voor confocale microscopie is de beelddiepte beperkt tot ongeveer 100 μm vanaf de coverslip, waarna lichtverstrooiing de signaalkwaliteit en volgnauwkeurigheid verslechtert. Multifoton- en lichtbladmicroscopie kan dit dieptebereik aanzienlijk vergroten, ten koste van extra instrumentatie en protocolaanpassing. De semi-geautomatiseerde trackingmethode is aanzienlijk efficiënter dan handmatige annotatie, maar vereist nog steeds aanzienlijke correctietijd, vooral in dichte weefsels (Sectie 7.4).
Beide strategieën zijn gemakkelijk uitbreidbaar. Door de co-expressie van de respondent met de nucleaire marker te variëren, kunnen verschillende aspecten van het gedrag van single-cell worden onderzocht, van corticale Myosine-II voor mechanische dynamica tot junctionale E-cadherine voor adhesie-remodellering, calciumbiosensoren zoals tq-Ca-FLITS en ColBD-Twitch, of metabole biosensoren zoals SoNar voor cellulaire NAD+/NADH redoxtoestand, waardoor gelijktijdige uitlezing van celidentiteit, afstamming en fysiologische toestand binnen hetzelfde organoïde9 mogelijk is. 25,26,27. Het aanpassen van de mengverhouding stelt de analyse af: schaars gelabelde cellen maken enkelcel-attributie van membraansignalen mogelijk, terwijl zeldzame niet-gelabelde cellen buurtreacties vertonen. De fate reporter-strategie is uitbreidbaar naar elke endogene locus die geschikt is voor CRISPR-HOT of HDR-gebaseerde tagging. Het combineren van beide benaderingen binnen hetzelfde organoïde zou gelijktijdige tracking van de afstammingscommitment en de dynamiek van enkele cel mogelijk maken.
In bredere zin is de beeldvormings- en analysepijplijn toepasbaar op organoïden afkomstig van andere epitheelweefsels, waaronder maag-, colonische, lever- en pancreasmodellen. Geïnduceerde pluripotente stamcel (iPSC)-afgeleide organoïden zijn een veelbelovende uitbreiding, aangezien H2B-gebaseerde nucleaire labeling en mozaïekgeneratie door celmenging direct overdraagbaar zijn, en de pijplijn patiëntspecifieke studies van cellot en competitieve dynamiek mogelijk kan maken. Synthetische embryomodellen zoals gastruloïden en stamcel-afgeleide embryoiden zijn ook geschikt voor enkelceltracking, hoewel hun complexere geometrie en hogere kerndichtheid mogelijk hertraining vereisen van het semi-geautomatiseerde organoïde-celvolgingssoftwaremodel voor neurale netwerken en aanpassing van beeldvormingsparameters. Hersenorganoïden vormen extra uitdagingen vanwege hun grote omvang en optische dichtheid, wat de diepte van de confocale beeldvorming beperkt. Bovendien vereisen hersenorganoïden weken tot maanden differentiatie voordat betekenisvolle beeldvormingsexperimenten kunnen worden uitgevoerd, wat de experimentele tijdlijn aanzienlijk verlengt ten opzichte van intestinale organoïden. Sommige hersenorganoïdeprotocollen vertrouwen ook op suspensiecultuur in plaats van BME-inbedding, wat niet compatibel is met de hier beschreven monstervoorbereidingsmethode en aanpassing aan matrix-ingebedde of oppervlakgehechte formaten vereist vóór beeldvorming. Lichtplaatmicroscopie, die minder fototoxiciteit en een grotere beelddiepte biedt, is mogelijk beter geschikt voor deze systemen13. Samen benadrukken deze uitbreidingen het brede potentieel van de pijplijn over diverse 3D-modelsystemen, buiten de hier beschreven epitheelorganoïden.
Openbaarmakingen
H.C. is uitvinder van patenten gerelateerd aan organoïdetechnologie. Alle andere auteurs geven geen concurrerende belangen aan.
Dankbetuigingen
Dit onderzoek wordt gefinancierd door het Ministerie van Onderwijs, Cultuur en Wetenschap van de Nederlandse overheid via het NWO Gravitation-project Material Driven Regeneration (024.003.013 ZWK MDR) en door de Europese Onderzoeksraad via de ERC Advanced Grant GutHormones (nr. 101020405)
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| A83-01 | Tocris | 2939 | |
| Accutase Cell Detachment Solution | Innovative Cell Technologies | AT104-500 | |
| Advanced Dulbecco's Modified Eagle Medium/F12 (Advanced DMEM/F12) | Invitrogen | 12634-010 | |
| B27 supplement | Thermo Fisher | 17504044 | |
| Blasticidin | InvivoGen | ant-bl-05 | |
| Cell strainer (40um) | Greiner Bio-one | 542140 | |
| CHIR99021 | Stemgent | 04-0004-base | |
| Confocal microscope | Leica | SP8 | met klimaatregeling voor temperatuur en CO2 |
| Cultrex Basement Membrane Extract (BME) | R&D Systems, Bio-Techne | 3533-001-02 | |
| Fiji | open source | open source https://imagej.net/software/fiji/ | |
| Glass bottom plates | CellVis | P24-1.5H-N | |
| Glutamax | Gibco | 35050-061 | |
| HEPES | Gibco | 15630-080 | |
| N2 supplement | Thermo Fisher | 17502048 | |
| N-acetylcysteine | Sigma-Aldrich | A9165 | |
| NEPA electroporation system | NEPAGENE | NEPA21 | |
| Nicotinamide | Sigma-Aldrich | N0636 | |
| NucSpot Live | ver-rood levende cel-nucleaire kleurstof | ||
| Noggin conditioned medium (U-Protein Express) | IPA Therapeutics | N002 | |
| OrganoidTracker | open source | open source https://organoidtracker.org/ | |
| p2T-CAG-mT2TP | zelfgemaakt | protocol om het plasmide te genereren DOI: 10.1126/science.adr8753 | |
| p2T-H2B-iRFP-IRES-PuroR | zelfgemaakt | protocol om het plasmide te genereren DOI: 10.1126/science.adr8753 | |
| p2T-H2B-mCherry-IRES-BlastR | zelfgemaakt | protocol om het plasmide te genereren DOI: 10.1126/science.adr8753 | |
| Penicillin/Streptomycin | Gibco | 11548876 | |
| Primocin | InvivoGen | ant-pm-05 | |
| Prostaglandin E2 | Tocris | 2296 | |
| puromycin | InvivoGen | ant-pr | |
| Recombinant human EGF | Peprotech | AF-100-15 | |
| Recombinant Human IL-22 | Peprotech | 200-22 | |
| Recombinant human R-spondin 1 | Thermo Fisher | 120-38-5UG | |
| Recombinant murine EGF | Thermo Fisher | 315-09-500UG | |
| Recombinant murine Noggin | Thermo Fisher | 250-38-100UG | |
| R-spondin conditioned medium (U-Protein Express) | IPA Therapeutics | R001 | |
| SiR-DNA | ver-rood levende cel-DNA kleurstof | ||
| SB202190 (p38 inhibitor) | Sigma-Aldrich | S7076 | |
| Suspension plate for organoid culture | Greiner | 665102 | |
| Trypan blue | Gibco | 15250061 | |
| TrypLE | Gibco | 12605-010 | |
| Wnt surrogate | U-Protein Express | op bestelling | |
| Wnt3A conditioned medium | zelfgemaakt | De productie van Wnt3A geconditioneerd medium vindt u hier: https://doi.org/10.1002/cpim.106 | |
| Y-27632 dihydrochloride | Abmole Bioscience | M1817 |
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar