Deze studie onderzoekt letsel aan het maagslijmvlies geassocieerd met clopidogrel-behandeling bij ratten en maagepitheelcellen, waarbij de nadruk ligt op de associatie met moleculaire veranderingen gerelateerd aan stress van het endoplasmatisch reticulum, apoptose en systemische ontsteking.
Onderzoeksartikel
Clopidogrel-geïnduceerde schade aan het maagslijmvlies geassocieerd met stress van het endoplasmatisch reticulum bij ratten
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Clopidogrel wordt op grote schaal gebruikt als antiplateletmiddel voor de preventie en behandeling van arteriële trombotische aandoeningen, maar de klinische toepassing ervan kan worden beperkt door gastro-intestinale bijwerkingen, waaronder beschadiging van het maagslijmvlies. Omdat de overleving van epitheelcellen essentieel is voor het behoud van de integriteit van het maagslijmvlies, stelden wij de hypothese op dat clopidogrel-geïnduceerde beschadiging van het maagepitheel gepaard zou gaan met veranderingen in markers gerelateerd aan ER-stress en apoptose. Om deze hypothese te toetsen, werden GES-1 humane maagepitheelcellen behandeld met verschillende concentraties clopidogrel, waarna de celviabiliteit, apoptose, celcyclusverdeling en moleculaire veranderingen werden geëvalueerd met behulp van de Cell Counting Kit-8 (CCK-8) assay, flowcytometrie, kwantitatieve real-time polymerasekettingreactie (qRT-PCR) en Western blotting. Parallel daaraan kregen Sprague-Dawley ratten clopidogrel toegediend via een sonde om een in vivo model van maagslijmvliesbeschadiging te vestigen. Pathologische veranderingen van het maagslijmvlies werden beoordeeld via hematoxyline- en eosinekleuring, en serumspiegels van inflammatoire cytokinen werden gemeten met een enzyme-linked immunosorbent assay (ELISA). Clopidogrel verminderde de viabiliteit van GES-1 cellen, bevorderde apoptose en veranderde de progressie van de celcyclus. Bij ratten induceerde clopidogrel erosie van het maagslijmvlies, oedeem en infiltratie van inflammatoire cellen, vergezeld van verhoogde serumspiegels van interleukine (IL)-1β, IL-6 en tumornecrosefactor-α (TNF-α). Clopidogrel verhoogde bovendien de expressie van de ER-stressmarkers C/EBP homologous protein (CHOP) en activating transcription factor 5 (ATF5), verhoogde de expressie van Bcl-2-associated X protein (Bax), verlaagde de expressie van B-cell lymphoma 2 (Bcl-2) en verhoogde de Bax/Bcl-2 ratio in zowel maagweefsels als GES-1 cellen. Deze bevindingen suggereren dat clopidogrel-geïnduceerde beschadiging van het maagslijmvlies geassocieerd is met een verhoogde expressie van ER-stressgerelateerde markers en een verstoring van de Bax/Bcl-2 balans, hoewel in deze studie geen direct causaal ER-stress-mitochondriale apoptosepad werd vastgesteld.
Inleiding
De aangeboren en adaptieve immuunsystemen van het maagslijmvlies, bestaande uit epitheelcellen, immuuncellen en signaleringsmoleculen, werken samen om de mucosale integriteit te behouden en dienen als een kritieke fysiologische barrière tegen schadelijke factoren1,2. Deze beschermende functie is essentieel voor de gastro-intestinale homeostase, en verstoring hiervan kan bijdragen aan de ontwikkeling van maagziekten, waaronder gastritis3. Klinisch gezien is door geneesmiddelen geïnduceerde beschadiging van het maagslijmvlies een veelvoorkomende complicatie, waarbij niet-steroïde anti-inflammatoire geneesmiddelen en antiplateletmiddelen tot de meest frequente oorzaken behoren4. De integriteit van het maagslijmvlies is afhankelijk van een dynamisch evenwicht tussen celproliferatie en apoptose5. Chronische blootstelling aan omgevingsfactoren, waaronder medicatie, kan dit evenwicht verstoren, apoptose bevorderen en leiden tot mucosale beschadiging6,7. Het endoplasmatisch reticulum speelt een centrale rol bij het behoud van de intracellulaire homeostase. Onder omstandigheden van cellulaire stress activeert de accumulatie van misvouwen of ongevouwen eiwitten de unfolded protein response, waaronder de PERK/eIF2α/ATF4/CHOP-signalering, wat apoptose kan bevorderen en de expressie van eiwitten uit de B-cell lymphoma 2 (Bcl-2)-familie kan veranderen8. ATF5 is ook betrokken bij mitochondriële stressreacties en de interactie tussen mitochondriële dysfunctie en stress van het endoplasmatisch reticulum9. Recente klinische bewijzen wijzen erop dat continue antiplatelettherapie, waaronder clopidogrel, geassocieerd is met progressieve beschadiging van het slijmvlies van de maag en dunne darm10.
Clopidogrel is een veel voorgeschreven antiplaatjesaggregatiemiddel dat metabolische activering vereist voordat het irreversibel bindt aan P2Y12-receptoren op plaatjes, waardoor adenosine-difosfaat-gemedieerde plaatjesaggregatie wordt geremd en antithrombotische effecten ontstaan11. Deze bioactivering vindt primair plaats via hepatische cytochroom P450-enzymen. Daarom reproduceert directe blootstelling van gekweekte gastrische epitheelcellen aan de moederverbinding clopidogrel niet de volledige metabolische en farmacokinetische context van een clopidogrelbehandeling in vivo. Er is echter toenemend bewijs dat een behandeling met clopidogrel geassocieerd kan zijn met recidiverende maagulcera en gastro-intestinale bloedingen, wat het belang onderstreept van een balans tussen antithrombotische effectiviteit en gastro-intestinale veiligheid12,13,14. Hoewel deze bijwerkingen zijn gerapporteerd, blijven de mechanismen ten grondslag aan clopidogrel-geassocieerde schade aan het maagslijmvlies onvolledig begrepen, wat de ontwikkeling van gerichte preventieve en therapeutische strategieën beperkt. In de huidige studie hebben we de effecten van clopidogrel op het maagslijmvlies onderzocht met behulp van Sprague-Dawley-ratten en GES-1-cellen. De ratten kregen clopidogrel via sondevoeding, en aanvullende in vitro experimenten werden uitgevoerd met GES-1-cellen. Histopathologische, moleculaire en cellulaire analyses werden uitgevoerd om te onderzoeken of clopidogrel-geïnduceerde schade aan het maagslijmvlies geassocieerd is met stress van het endoplasmatisch reticulum en apoptose. Bijgevolg richtte de huidige studie zich op het karakteriseren van de moleculaire veranderingen geassocieerd met clopidogrel-geïnduceerde maagschade, in plaats van het vaststellen van een causaal signaleringspad. Onze bevindingen bieden aanvullend inzicht in de moleculaire veranderingen geassocieerd met clopidogrel-geïnduceerde schade aan het maagslijmvlies en kunnen bijdragen aan toekomstige studies gericht op het voorkomen en beheersen van deze bijwerkingen.
Protocol
Alle experimentele procedures met dieren zijn beoordeeld en goedgekeurd door het Lab of Animal Experimental Ethical Inspection van Dr. Can Biotechnology (Zhejiang) Co., Ltd. De studie is uitgevoerd in overeenstemming met de institutionele richtlijnen voor de zorg en het gebruik van laboratoriumdieren. Het goedkeuringsnummer voor dierethiek was DRK-20251015210.
Dieren en cellijnen
De ethische goedkeuring omvatte het gebruik van 20 SPF-grade Sprague–Dawley ratten. In totaal werden 12 mannelijke SPF-grade Sprague–Dawley ratten, in de leeftijd van 6–8 weken en met een gewicht van 280–300 g aan het begin van het experiment, opgenomen in deze studie. De ratten waren afkomstig van Hangzhou Ziyuan Laboratory Animal Technology Co., Ltd. (Hangzhou, China; productielicentie nr. SCXK [Zhejiang] 2024-0004) en werden willekeurig toegewezen aan de controlegroep en de clopidogrel-behandelde groep, met zes ratten per groep. De ratten werden gehuisvest in een gecontroleerde omgeving bij ongeveer 22°C onder een licht/donkercyclus van 12 u, met vrije toegang tot standaardvoer en gesteriliseerd drinkwater. Alle ratten kregen één week de tijd om te acclimatiseren voor aanvang van het experiment. Clopidogrelhydrogensulfaat werd gesuspendeerd in 0,5% natriumcarboxymethylcellulose (CMC-Na) in een concentratie van 0,781 mg/mL. Ratten in de clopidogrel-behandelde groep ontvingen clopidogrelhydrogensulfaat via orale gavage in een volume van 10 mL/kg lichaamsgewicht (equivalent aan 1 mL/100 g lichaamsgewicht en een dosis van 7,81 mg/kg) één keer daags gedurende 3 opeenvolgende dagen. Ratten in de controlegroep ontvingen een gelijk volume 0,5% CMC-Na. De dosis en de behandelingsduur van 3 dagen waren geselecteerd op basis van een eerder beschreven kortetermijnratmodel voor orale toediening van clopidogrel. Na de laatste gavage op dag 3 werd het voer gedurende 12 u weggenomen, terwijl water ad libitum werd aangeboden. De ratten werden geanestheseerd in een inductiekamer met 3% isofluraan in zuurstof, en de anesthesie werd in stand gehouden met 1,5%–2,0% isofluraan toegediend via een neusmasker. Voldoende anesthesiediepte werd bevestigd door de afwezigheid van corneale en pedale terugtrekreflexen. Bloed werd verzameld via terminale hartpunctie onder diepe anesthesie. Terwijl ze diep geanestheseerd bleven, werden de ratten geëuthanaseerd door exsanguinatie gevolgd door bilaterale thoracotomie. De dood werd bevestigd door de afwezigheid van spontane ademhaling en hartactiviteit gedurende ten minste 5 min, samen met de afwezigheid van corneale en pedale terugtrekreflexen. De maag werd vervolgens snel verwijderd, geopend langs de grote kromming en voorzichtig gespoeld met ijskoud saline.
De humane gastrische mucosale epitheelcellijn GES-1 werd verkregen van iCell Bioscience Inc. (Shanghai, China; Cat. No. iCell-h062) en werd door de leverancier geauthenticeerd via short tandem repeat-profilering. Cellen werden gekweekt in RPMI-1640 medium aangevuld met 10% foetaal runderserum (FBS) en 1% penicilline-streptomycine in een bevochtigde incubator bij 37°C met 5% CO₂. Voor de experimenten werden cellen uit vroege passages, tussen passage 3 en 10, gebruikt. Wanneer de celconfluentie ongeveer 80%–90% bereikte, werden de cellen gesplitst met een ratio van 1:3. Cellen in de logaritmische groeifase werden gebruikt voor de daaropvolgende experimenten. Voor de CCK-8 assay werden cellen uitgezaaid in 96-wells platen met 6 × 10³ cellen/well. Voor apoptose- en celcyclusanalyses werden cellen uitgezaaid in 6-wells platen met ongeveer 5 × 10⁵ cellen/well en mochten ze hechten voorafgaand aan de behandeling met clopidogrel.
Chemicaliën en oplossingen
Clopidogrelwaterstofsulfaat (Cat. No. C874834; zuiverheid ≥ 99%) werd gebruikt voor de dier- en celexperimenten. Een clopidogrel-stamsoplossing werd bereid door 100 mg clopidogrelpoeder op te lossen in dimethylsulfoxide (DMSO) om een 1 M stamsoplossing te verkrijgen. De stamsoplossing werd voor gebruik verder verdund tot de vereiste werkconcentraties. De 1 M stamsoplossing werd seriële verdund met DMSO om 1000× doseeroplossingen te bereiden bij concentraties van 10, 100, 200, 400, 600, 800 en 1000 mM. Direct voor de behandeling werd elke 1000× doseeroplossing toegevoegd aan volledig cultuurmedium in een verhouding van 1:1000 (v/v) om uiteindelijke clopidogrelconcentraties van respectievelijk 0,01, 0,1, 0,2, 0,4, 0,6, 0,8 en 1,0 mM te verkrijgen. De vehikelcontrolegroep ontving een gelijk volume DMSO zonder clopidogrel. De uiteindelijke DMSO-concentratie werd zo in alle groepen op 0,1% (v/v) gehouden. Gecultiveerde GES-1-cellen reproduceren de hepatische cytochroom P450-gemedieerde bioactivering van clopidogrel niet. Daarom werd directe clopidogrelbehandeling gebruikt als een verkennend blootstellingsmodel voor de moederverbinding. Het concentratiebereik werd gekozen om concentratieafhankelijke cellulaire responsen onder de experimentele omstandigheden te karakteriseren en mag niet worden geïnterpreteerd als equivalent aan klinisch haalbare plasma- of maagweefselconcentraties.
Cel-subcultuur
Compleet medium werd bereid door basaal kweekmedium aan te vullen met FBS en penicilline-streptomycine. Wanneer de celconfluentie ongeveer 80% bereikte, werd het kweekmedium verwijderd en werden de cellen drie keer gewassen met steriele fosfaatgebufferde zoutoplossing (PBS). De cellen werden vervolgens gedurende ongeveer 1–2 min gedigereerd met een trypsine-ethylenediaminetetraazijnzuur (EDTA)-oplossing. Na gedeeltelijke celdetachering werd compleet medium toegevoegd om de digestie te stoppen. De celsuspensie werd gecentrifugeerd bij 1.200 × g gedurende 3 min. Na verwijdering van het supernatant werd de celpellet geresuspendeerd in 1–2 mL compleet medium en gezaaid in nieuwe kweekschalen volgens de experimentele vereisten.
CCK-8 Celviabiliteitsassay
GES-1-cellen in de logaritmische groeifase werden gezaaid in 96-wellplaten met 6 × 10³ cellen/well en gedurende de nacht gekweekt om celhechting mogelijk te maken. Na adhesie werden de cellen gedurende 24 uur behandeld met verschillende concentraties clopidogrel (0, 0,01, 0,1, 0,2, 0,4, 0,6, 0,8 en 1,0 mM). De controlegroep ontving dezelfde uiteindelijke concentratie van het vehikel. Na de behandeling werd CCK-8-oplossing aan elke well toegevoegd en geïncubeerd bij 37°C volgens de instructies van de kit. De absorptie bij 450 nm werd gemeten met een microplatelezer. De cellevensvatbaarheid werd berekend als een percentage van de controlegroep. Op basis van de concentratie-responresultaten werd een behandeling met 0,1 mM clopidogrel gedurende 24 uur gekozen voor de daaropvolgende analyses van apoptose, celcyclus, qPCR en Western blot.
Flowcytometrie-analyse
GES-1-cellen werden gezaaid in 6-well platen en na aanhechting van de cellen 24 h behandeld met 0,1 mM clopidogrel. Na de behandeling werden zowel de drijvende als de adherentie cellen verzameld. De adherente cellen werden gedigesteerd met trypsine zonder EDTA, twee keer gewassen met koude PBS en resuspendeerd in bindingsbuffer. De cellen werden gekleurd met een Annexin V-FITC/PI Apoptosis Kit volgens de instructies van de fabrikant. Na incubatie bij kamertemperatuur in het donker werden apoptotische cellen gedetecteerd met een RaiseCyte 2L6C flowcytometer. Gegevens werden verzameld met de RaiseFlower-acquisitiesoftware en geanalyseerd met FlowJo-software (versie 10.8.1). Vroeg-apoptotische, laat-apoptotische en totale apoptotische celpopulaties werden gekwantificeerd met FlowJo-software.
Flowcytometrische analyse van de celcyclusverdeling
GES-1-cellen werden uitgezaaid in 6-wells platen en gedurende 24 h behandeld met 0,1 mM clopidogrel. Na de behandeling werden de cellen geoogst, gewassen met PBS en gefixeerd in vooraf gekoelde 70% ethanol bij 4°C. De gefixeerde cellen werden vervolgens gewassen om resterende ethanol te verwijderen en in het donker geïncubeerd met RNase A en een propidiumjodide-kleuringsoplossing volgens de instructies van de fabrikant. De celcyclusdistributie werd geanalyseerd met een flowcytometer. De gegevens werden verzameld met de acquisitiesoftware en geanalyseerd met FlowJo-software. De celcyclusdistributies werden gefit met behulp van het Watson-model, waarna de percentages cellen in de G0/G1-, S- en G2/M-fasen werden berekend.
Kwantitatieve Real-Time PCR (qPCR)
Totaal RNA werd geëxtraheerd uit GES-1 cellen en rattenmaagweefselmonsters met een RNA-extractiekit volgens de instructies van de kit. Voor weefselmonsters werden maagslijmvliesweefsels snel verzameld, gehomogeniseerd onder lage-temperatuuromstandigheden en onderworpen aan RNA-extractie. De RNA-concentratie en -zuiverheid werden bepaald door de absorptie bij 260 en 280 nm te meten. Gelijke hoeveelheden RNA werden omgezet in complementair DNA (cDNA) met een reverse transcriptiekit met verwijdering van genomisch DNA. Kwantitatieve real-time PCR werd uitgevoerd met een SYBR Green-gebaseerde PCR-mastermix. Elke reactie werd uitgevoerd in een totaal volume van 20 µL bestaande uit 10 µL 2× mastermix, 1 µL cDNA, 0,4 µL forward primer, 0,4 µL reverse primer en 8,2 µL RNase-vrije ddH₂O. De thermische cycluseigenschappen waren als volgt: initiële denaturatie bij 95°C gedurende 10 min, gevolgd door 40 cycli van denaturatie bij 95°C gedurende 10 s, annealing bij 60°C gedurende 30 s en extensie bij 72°C gedurende 30 s. De expressieniveaus van CHOP, ATF5, Bcl-2 en Bax werden bepaald. GAPDH werd gebruikt als intern referentiegen. De relatieve genexpressie werd berekend met de 2−ΔΔCt-methode. Primersequenties zijn opgenomen in Aanvullende Tabel 1.
Western Blot
Totaaleiwit werd geëxtraheerd uit GES-1-cellen en maagweefselmonsters van ratten. Voor de celmonsters werden behandelde GES-1-cellen gewassen met koude PBS en gelyseerd met radioimmunoprecipitatie-assay (RIPA) lysisbuffer met een protease-inhibitor. Voor de weefselmonsters werden maagslijmvliesweefsels gehomogeniseerd in RIPA-buffer onder lage-temperatuuromstandigheden en vervolgens gecentrifugeerd om het supernatant te verzamelen. Eiwitconcentraties werden bepaald met een BCA-eiwitassay. In totaal 20 µg eiwit per lane werd gescheiden via sodiumdodecylsulfaat-polyacrylamidegelelektroforese (SDS-PAGE) en overgebracht op polyvinylideendifluoride (PVDF) membranen. Na blokkeren met bovien serumalbumine (BSA) werden de membranen overnight bij 4°C geïncubeerd met primaire antilichamen tegen CHOP (1:1000), ATF5 (1:1000), Bcl-2 (1:1000), Bax (1:1000) en β-actin (1:5000). Na het wassen werden de membranen geïncubeerd met de corresponderende met mierikswortelperoxidase geconjugeerde secundaire antilichamen (1:10000). Eiwitbanden werden gevisualiseerd met een enhanced chemiluminescence-reagens en vastgelegd met een chemiluminescentie-beeldvormingssysteem. Bandintensiteiten werden gekwantificeerd met beeldanalyse-software en genormaliseerd naar β-actin.
Histopathologische Evaluatie
Monsters van maagweefsel werden verzameld van Sprague–Dawley ratten na behandeling met clopidogrel en gefixeerd in 10% neutraal gebufferde formaline. De monsters werden gedehydrateerd, ontkleurd, ingebed in paraffine en gesneden met een dikte van 4 µm. De paraffinecoupes werden gekleurd met hematoxiline en eosine. Histopathologische veranderingen werden kwalitatief geëvalueerd onder een lichtmicroscoop op basis van mucosale morfologie, epitheliale integriteit, oedeem en infiltratie van ontstekingscellen. Representatieve afbeeldingen werden vastgelegd. Er is geen histologisch scoringssysteem toegepast.
Immunohistochemie
Paraffine-ingebedde coupes van maagweefsel werden gedeparaffineerd in xyleen en gerehydrateerd via een gradiënt van ethanol. Hitte-geïnduceerde antigeenherstel werd uitgevoerd in citraatbuffer. Endogene peroxidase-activiteit werd geblokkeerd met 3% waterstofperoxide gedurende 10 min, en aspecifieke binding werd geblokkeerd met normaal geiten serum gedurende 30 min bij kamertemperatuur. De coupes werden vervolgens overnacht bij 4°C geïncubeerd met primaire antilichamen tegen CHOP, ATF5, Bcl-2 en Bax. Na het wassen met PBS werden de coupes geïncubeerd met het overeenkomstige mierikswortelperoxidase-geconjugeerde secundaire antilichaam. Immunoreactieve signalen werden gevisualiseerd met behulp van een DAB-chromogene oplossing, gevolgd door tegenkleuring met hematoxyline. De coupes werden gedehydrateerd, geklaard, gemonteerd en onderzocht onder een lichtmicroscoop. Representatieve afbeeldingen werden vastgelegd en het positieve kleuringsareaal werd gekwantificeerd met behulp van software voor beeldanalyse.
Immunofluorescentiële kleuring
Paraffine-ingebedde secties van maagweefsel werden gedeparaffineerd, gehydrateerd en onderworpen aan hitte-geïnduceerde antigeenherstel in citraatbuffer. Na blokkering met normaal geiten serum gedurende 30 min werden de secties een nacht bij 4°C geïncubeerd met primaire antilichamen tegen CHOP (1:50), ATF5 (1:100), Bcl-2 (1:50) en Bax (1:200). Na het wassen met PBS werden de secties 1 h bij kamertemperatuur in het donker geïncubeerd met de overeenkomstige fluorescente secundaire antilichamen (1:500) en vervolgens tegengekleurd met DAPI. Beelden werden vastgelegd met een fluorescentiemicroscoop bij een vergroting van ×200. Drie willekeurig geselecteerde, niet-overlappende velden per dier werden geanalyseerd met Image-Pro Plus 6.0, waarbij de fluorescentie-intensiteit werd uitgedrukt als IOD/Area. Er werden drie dieren per groep in de analyse opgenomen.
Enzyme-Linked Immunosorbent Assay (ELISA)
Bloedmonsters werden afgenomen van Sprague–Dawley ratten na de behandeling en mochten bij kamertemperatuur stollen. Serum werd gescheiden door centrifugatie en bewaard bij −80°C tot aan de analyse. De serumspiegels van IL-1β, IL-6 en TNF-α werden gemeten met ELISA-kits volgens de instructies van de kit. De absorbentie werd gemeten met een microplaatlezer en de cytokineconcentraties werden berekend aan de hand van de standaardcurves.
Statistische analyse
Statistische analyses werden uitgevoerd met behulp van statistische analysesoftware. Gegevens worden weergegeven als het gemiddelde ± SD. Normaliteit en homogeniteit van de variantie werden respectievelijk beoordeeld met de Shapiro–Wilk-test en de Levene-test. Vergelijkingen tussen twee groepen werden uitgevoerd met de Student's t-test. Vergelijkingen tussen meerdere groepen werden uitgevoerd met een eenweg-variantieanalyse gevolgd door de post hoc-test van Dunnett. Een waarde van P < 0,05 werd beschouwd als statistisch significant. Alle celexperimenten werden uitgevoerd met ten minste drie onafhankelijke biologische replica's.
Resultaten
Clopidogrel vermindert de levensvatbaarheid van GES-1-cellen en verhoogt apoptose in vitro
We hebben eerst onderzocht of clopidogrel de levensvatbaarheid en apoptose van GES-1-cellen beïnvloedt. CCK-8-assays toonden aan dat behandeling met clopidogrel de levensvatbaarheid van GES-1-cellen significant verminderde (Figuur 1A,B), wat duidt op een verminderde celviabiliteit. Op basis van de algemene afname van de levensvatbaarheid over het geteste concentratiebereik, werd 0,1 mM clopidogrel gedurende 24 u geselecteerd voor alle daaropvolgende celexperimenten. Vervolgens werd flowcytometrie uitgevoerd om apoptose en de celcyclusdistributie te analyseren (Figuur 1C–F). Flowcytometrische analyse toonde een verhoogd aandeel cellen in de S-fase aan, vergezeld van een verminderde G0/G1-populatie en geen evidente toename in de G2/M-populatie, wat wijst op S-fase-accumulatie in plaats van G2/M-fase-arrest. De resultaten toonden aan dat clopidogrel apoptose significant verhoogde en de celcyclusdistributie in GES-1-cellen veranderde in vergelijking met de controlegroep. Collectief geven deze bevindingen aan dat clopidogrel de levensvatbaarheid van GES-1-cellen vermindert en geassocieerd is met verhoogde apoptose en veranderingen in de progressie van de celcyclus. Deze bevindingen tonen cytotoxische reacties aan na directe blootstelling aan de clopidogrel-moederverbinding onder de gekozen experimentele omstandigheden. Ze stellen niet vast dat vergelijkbare effecten optreden bij klinisch relevante blootstellingsniveaus of dat de waargenomen reacties worden gemedieerd door de actieve clopidogrel-metaboliet.
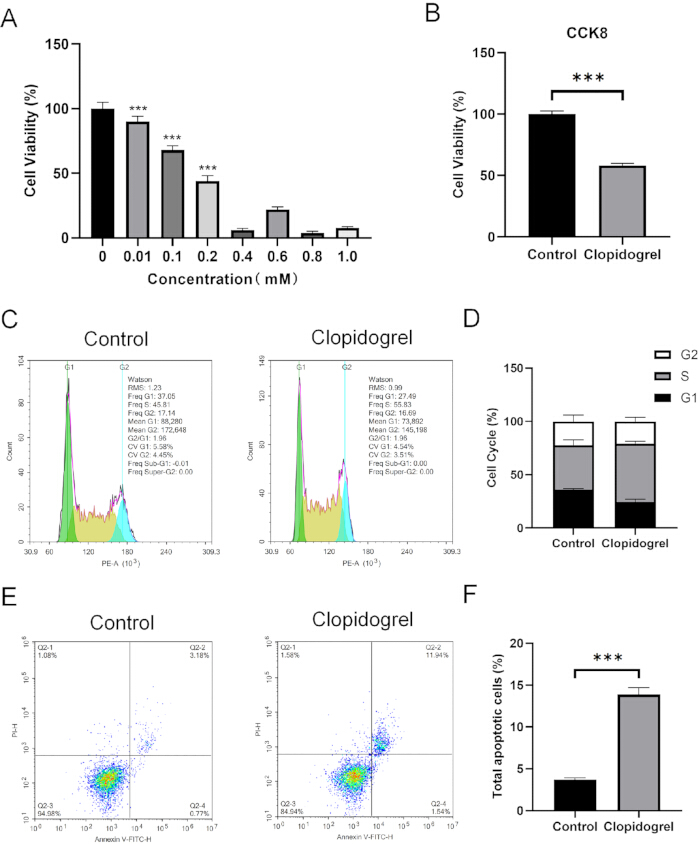
Figuur 1. Clopidogrel vermindert de viabiliteit van GES-1-cellen en verhoogt apoptose. (A) De celviabiliteit van de humane gastrische epitheelcellijn GES-1 werd beoordeeld met de CCK-8-assay na behandeling met toenemende concentraties clopidogrel (0–1,0 mM) gedurende 24 u. (B) Kwantitatieve vergelijking van de celviabiliteit tussen de controlegroep en de groep behandeld met 0,1 mM clopidogrel gedurende 24 u. (C) Representatieve flowcytometrische celcyclusprofielen geanalyseerd met het Watson-model. (D) Kwantificering van de percentages cellen in de G0/G1-, S- en G2/M-fasen. Behandeling met clopidogrel verhoogde de S-fasepopulatie zonder een evidente toename van de G2/M-populatie. (E) Representatieve flowcytometrie dot-plots van apoptose na kleuring met Annexine V-fluoresceïne-isothiocyanaat (FITC) en propidiumjodide (PI). (F) Kwantificering van de totale apoptotische celpopulatie. Alle celexperimenten werden uitgevoerd met drie onafhankelijke biologische herhalingen (n = 3). Gegevens worden gepresenteerd als het gemiddelde ± standaarddeviatie (SD). Statistische significantie werd bepaald door vergelijking met de controlegroep. ***P < 0,001. Klik hier om een grotere versie van deze figuur te bekijken.
Door clopidogrel geïnduceerde maagbeschadiging is geassocieerd met systemische inflammatie
Sprague–Dawley ratten werden willekeurig verdeeld over twee groepen (n = 6 per groep): een controlegroep en een met clopidogrel behandelde groep die dagelijks via gavage werd behandeld. De dosis clopidogrel en het behandelingsregime van 3 dagen werden gekozen op basis van een eerder gerapporteerd ratmodel van clopidogrel-geïnduceerde maagschade16. Na 3 dagen werden maagweefsels verzameld voor hematoxyline en eosine (H&E) kleuring. Histopathologisch onderzoek toonde maagslijmerosies, oedeem en infiltratie van ontstekingscellen aan in de met clopidogrel behandelde groep vergeleken met de controlegroep (Figuur 2A). De serumspiegels van inflammatoire cytokinen werden gemeten via ELISA. De met clopidogrel behandelde groep vertoonde significant hogere serumspiegels van interleukine (IL)-1β, IL-6 en tumornecrosefactor-α (TNF-α) dan de controlegroep (Figuur 2B–D). Deze bevindingen geven aan dat behandeling met clopidogrel geassocieerd is met beschadiging van het maagslijmvlies en verhoogde systemische ontstekingsreacties15,16.
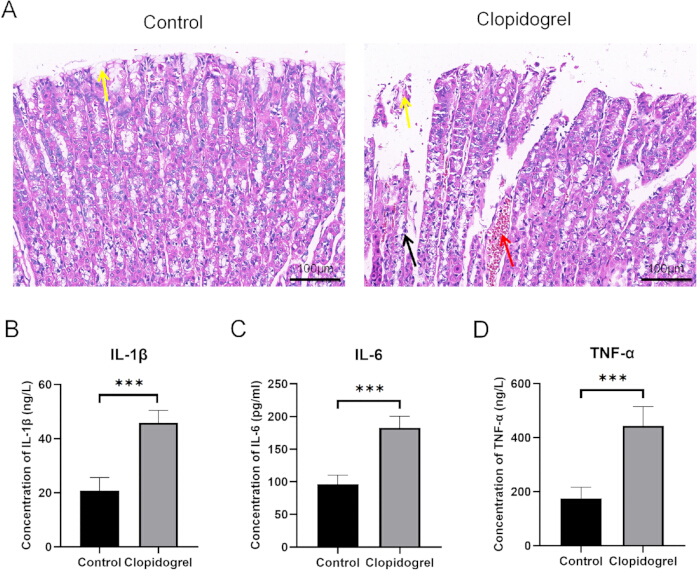
Figuur 2. Clopidogrel induceert letsel aan het maagslijmvlies en verhoogt de circulerende niveaus van inflammatoire cytokinen bij ratten. (A) Representatieve coupes van het maagslijmvlies van controle- en clopidogrel-behandelde Sprague–Dawley ratten, gekleurd met hematoxyline en eosine (H&E). Histologisch onderzoek toont een behouden architectuur van het maagslijmvlies in de controlegroep en morfologische veranderingen in de clopidogrel-behandelde groep. Gele pijlen duiden op epitheelcellen van het maagslijmvlies, rode pijlen duiden op focale congestie binnen de slijmvlieslaag en zwarte pijlen duiden op milde infiltratie van inflammatoire cellen. Originele vergroting, ×200; schaalbalk = 100 µm. n = 6 dieren per groep. (B–D) Serumconcentraties van interleukine (IL)-1β, IL-6 en tumornecrosefactor-α (TNF-α) werden gemeten met een enzyme-linked immunosorbent assay (ELISA). Gegevens worden weergegeven als het gemiddelde ± SD; n = 6 dieren per groep. ***P < 0,001 vergeleken met de controlegroep. Klik hier om een grotere versie van deze figuur te bekijken.
Clopidogrel verandert markers gerelateerd aan ER-stress en apoptose in het maagslijmvlies van ratten
Om de moleculaire veranderingen geassocieerd met clopidogrel-geïnduceerde maagslijmvliesbeschadiging te onderzoeken, werd immunohistochemische kleuring uitgevoerd op coupes van maagweefsel. Representatieve beelden toonden een sterkere kleuring van CHOP, ATF5 en Bax in de met clopidogrel behandelde groep dan in de controlegroep, terwijl de Bcl-2-kleuring zwakker leek (Figuur 3A). Kwantitatieve analyse van IOD/oppervlakte toonde aan dat de kleuring van CHOP, ATF5 en Bax significant was toegenomen na behandeling met clopidogrel (Figuur 3B,C,E). De Bcl-2-kleuring vertoonde een dalende trend, hoewel het verschil geen statistische significantie bereikte (Figuur 3D). Deze resultaten geven aan dat behandeling met clopidogrel geassocieerd is met een gewijzigde expressie van stress- en apoptoserelateerde eiwitten in het maagslijmvlies van ratten. Immunofluorescentieanalyse toonde sterkere CHOP- en ATF5-signalen in het maagslijmvliesweefsel van de met clopidogrel behandelde groep. Kwantitatieve analyse bevestigde significante toenames van CHOP (Figuren 4A en 5A) en ATF5 (Figuren 4B en 5B), terwijl Bcl-2 (Figuren 4C en 5C) en Bax (Figuren 4D en 5D) respectievelijk dalende en stijgende trends vertoonden, zonder statistische significantie te bereiken. Samen wijzen deze bevindingen erop dat behandeling met clopidogrel geassocieerd is met een gewijzigde expressie van markers voor ER-stress en apoptose in het maagslijmvlies van ratten.
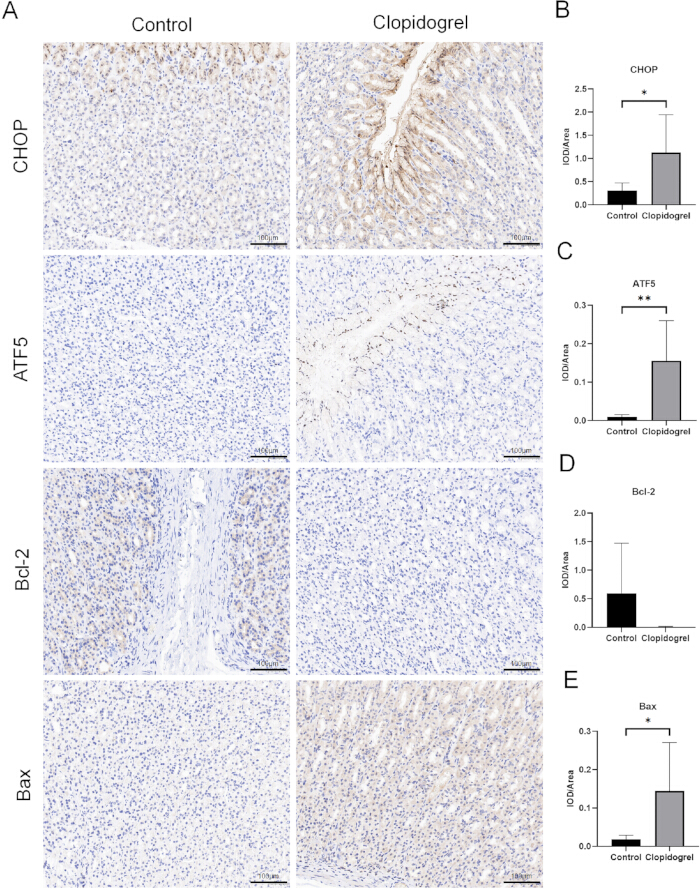
Figuur 3. Immunohistochemische detectie van eiwitten gerelateerd aan stress van het endoplasmatisch reticulum en apoptose in maagweefsel. (A) Representatieve immunohistochemische kleuringsbeelden van C/EBP homologous protein (CHOP), activating transcription factor 5 (ATF5), B-cell lymphoma 2 (Bcl-2) en Bcl-2-associated X protein (Bax) in maagslijmvliesweefsel van controle- en clopidogrel-behandelde Sprague–Dawley-ratten. Bruine kleuring duidt op positieve immunoreactiviteit, en kernen werden tegengekleurd met hematoxyline. De getoonde beelden zijn representatief voor alle geanalyseerde monsters, waarbij drie dieren per groep zijn opgenomen. Originele vergroting, ×200; schaalbalk = 100 µm. (B–E) Kwantitatieve analyse van de geïntegreerde optische dichtheid per oppervlakte-eenheid (IOD/Area) voor respectievelijk CHOP, ATF5, Bcl-2 en Bax. Gegevens worden gepresenteerd als het gemiddelde ± SD. *P < 0,05 en **P < 0,01 vergeleken met de controlegroep. Klik hier om een grotere versie van deze figuur te bekijken.
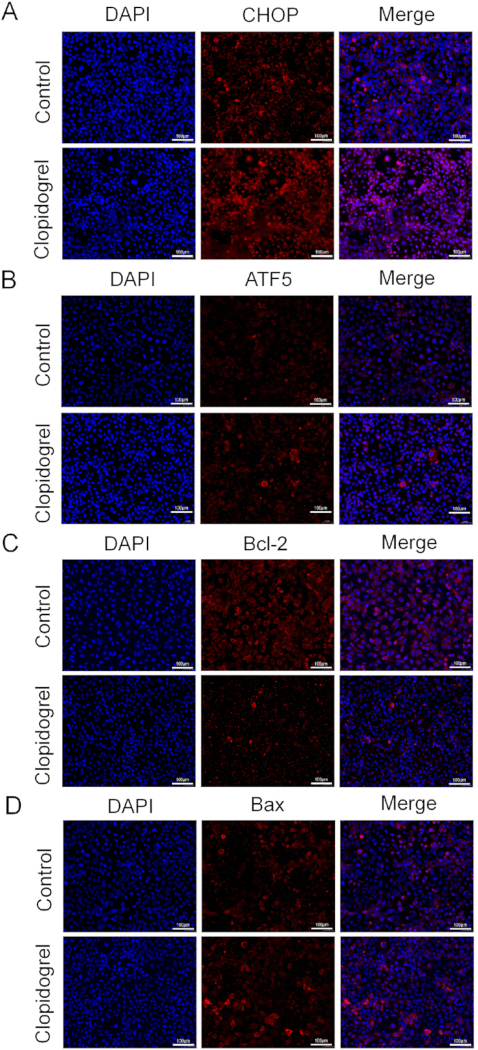
Figuur 4. Immunofluorescentiedetectie van eiwitten gerelateerd aan stress van het endoplasmatisch reticulum en apoptose in maagweefsel. Representatieve immunofluorescentiebeelden die de lokalisatie tonen van C/EBP homologous protein (CHOP), activating transcription factor 5 (ATF5), B-cell lymphoma 2 (Bcl-2) en Bcl-2-associated X protein (Bax) in maagslijmvliesweefsel van controle- en clopidogrel-behandelde Sprague–Dawley ratten. Kernen werden tegengekleurd met 4′,6-diamidino-2-phenylindole (DAPI) (blauw), en positieve immunofluorescentiekleuring wordt in rood getoond. Samengevoegde beelden worden in de rechterkolom getoond. (A) CHOP. (B) ATF5. (C) Bcl-2. (D) Bax. Originele vergroting, ×200; schaalbalk = 100 µm. De getoonde beelden zijn representatief voor alle geanalyseerde monsters, met n = 3 dieren per groep. Klik hier om een grotere versie van deze figuur te bekijken.
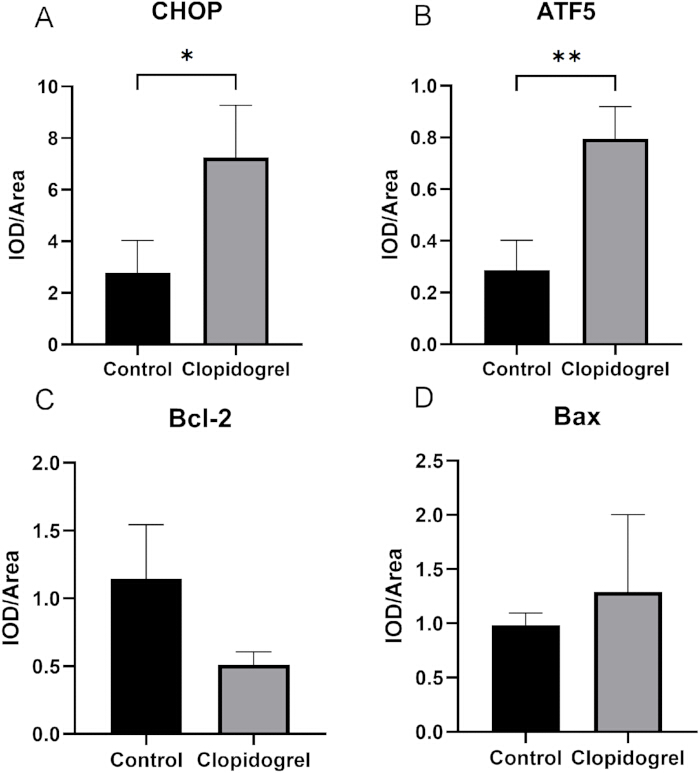
Figuur 5. Kwantitatieve analyse van immunofluorescentie voor eiwitten gerelateerd aan stress van het endoplasmatisch reticulum en apoptose in maagweefsel. (A–D) Kwantificering van de geïntegreerde optische dichtheid per eenheid oppervlak (IOD/Area) voor C/EBP homologous protein (CHOP), activating transcription factor 5 (ATF5), B-cell lymphoma 2 (Bcl-2) en Bcl-2-associated X protein (Bax) in maagslijmvliesweefsel van controle- en clopidogrel-behandelde Sprague–Dawley ratten. Voor elk dier werden drie willekeurig geselecteerde, niet-overlappende microscopische velden per weefselcoupe geanalyseerd met behulp van software voor beeldanalyse, en de gemiddelde waarde werd gebruikt voor de statistische analyse. Gegevens worden weergegeven als het gemiddelde ± SD; n = 3 dieren per groep. *P < 0.05 en **P < 0.01 vergeleken met de controlegroep. Klik hier om een grotere versie van deze figuur te bekijken.
Clopidogrel verandert de expressie van ER-stress- en apoptose-gerelateerde genen en eiwitten in GES-1-cellen en maagweefsel van ratten
Eerdere studies hebben aangetoond dat ER-stress een sleutelrol speelt in cellulaire stressresponsen en apoptose17,18. Om veranderingen in ER-stress-gerelateerde markers na clopidogrel-behandeling te evalueren, werd de expressie van CHOP en ATF5 onderzocht in GES-1-cellen. qRT-PCR toonde een verhoogde mRNA-expressie van CHOP en ATF5 aan na behandeling met clopidogrel. Western blot-analyse bevestigde verder de verhoogde eiwitexpressie van CHOP en ATF5 (Figuur 6A–E). De expressie van apoptose-gerelateerde eiwitten werd vervolgens geëvalueerd in GES-1-cellen en maagweefsel van ratten. In vergelijking met de controlegroep verhoogde de clopidogrel-behandeling de Bax-expressie en verlaagde deze de Bcl-2-expressie, wat resulteerde in een verhoogde Bax/Bcl-2-ratio (Figuur 6A–J). Deze expressiepatronen werden consistent waargenomen op zowel mRNA- als eiwitniveau in GES-1-cellen en maagweefsel van ratten. Samen tonen deze bevindingen aan dat clopidogrel-behandeling geassocieerd is met een veranderde expressie van ER-stress- en apoptose-gerelateerde markers in beide experimentele modellen.
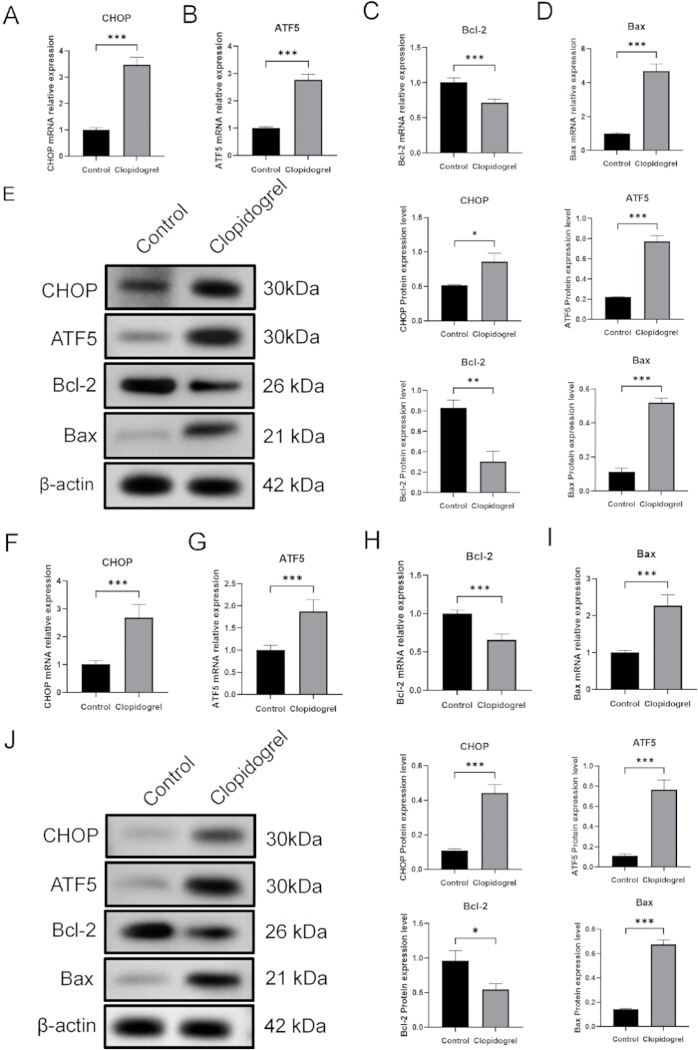
Figuur 6. Expressie van markers gerelateerd aan stress van het endoplasmatisch reticulum en apoptose in GES-1-cellen en maagweefsel van ratten na behandeling met clopidogrel. (A–D) Relatieve expressie van messenger RNA (mRNA) van C/EBP homologous protein (CHOP), activating transcription factor 5 (ATF5), B-cell lymphoma 2 (Bcl-2) en Bcl-2-associated X protein (Bax) in de humane gastrische epitheelcellijn GES-1, bepaald via kwantitatieve real-time polymerasekettingreactie (qRT-PCR). (E) Representatieve Western blot-afbeeldingen met bijbehorende densitometrische kwantificatie van de eiwitexpressie van CHOP, ATF5, Bcl-2 en Bax in GES-1-cellen. Eiwitexpressieniveaus werden genormaliseerd ten opzichte van β-actin. Celexperimenten werden uitgevoerd met drie onafhankelijke biologische replica's (n = 3). (F–I) Relatieve mRNA-expressie van CHOP, ATF5, Bcl-2 en Bax in maagweefsel van ratten, bepaald via qRT-PCR. (J) Representatieve Western blot-afbeeldingen met bijbehorende densitometrische kwantificatie van de eiwitexpressie van CHOP, ATF5, Bcl-2 en Bax in maagweefsel van ratten. Eiwitexpressieniveaus werden genormaliseerd ten opzichte van β-actin. Weefselexperimenten omvatten n = 3 dieren per groep. Gegevens worden weergegeven als het gemiddelde ± SD. Statistische significantie werd bepaald door vergelijking met de controlegroep. *P < 0.05, **P < 0.01 en ***P < 0.001. Klik hier om een grotere versie van deze figuur te bekijken.
Collectief tonen de resultaten aan dat behandeling met clopidogrel de levensvatbaarheid van GES-1 cellen verminderde, apoptose verhoogde, de expressie van markers gerelateerd aan ER-stress en apoptose veranderde, en geassocieerd was met letsel aan het maagslijmvlies gepaard gaand met verhoogde circulerende spiegels van inflammatoire cytokinen bij ratten. Deze bevindingen ondersteunen de hypothese van de studie dat behandeling met clopidogrel geassocieerd is met letsel aan het maagslijmvlies en gelijktijdige veranderingen in markers gerelateerd aan ER-stress en apoptose.
Beschikbaarheid van gegevens:
Alle gegevens die tijdens deze studie zijn gegenereerd of geanalyseerd, zijn opgenomen in dit gepubliceerde artikel en de bijbehorende aanvullende materialen. De primersequenties die zijn gebruikt voor RT-PCR staan vermeld in Aanvullende Tabel 1. De ruwe gegevens ter ondersteuning van alle figuren en individuele figuurpanelen, inclusief de oorspronkelijke experimentele datasets en bronbestanden, zijn beschikbaar in het bijbehorende aanvullende archief met Ruwe Gegevens (gecomprimeerd bestand).
Aanvullende Tabel 1. Primersequenties gebruikt voor RT-PCR-analyse. De forward (F) en reverse (R) primersequenties gebruikt voor RT-PCR-analyse van GAPDH, CHOP, ATF5, Bcl-2 en Bax in deze studie zijn vermeld in de 5′–3′ oriëntatie.Klik hier om dit bestand te downloaden.
Discussie
Clopidogrel wordt op grote schaal gebruikt voor de preventie en behandeling van cardiovasculaire ziekten; het klinische gebruik ervan is echter geassocieerd met bloedingsrisico's en gastro-intestinale complicaties, waaronder peptische zweren, bloedingen en perforaties19. Daarom is het begrijpen van de moleculaire veranderingen die gepaard gaan met clopidogrel-geïnduceerde maagschade belangrijk voor het verbeteren van de preventie en het beheer van deze bijwerkingen. In de huidige studie hebben we de effecten van clopidogrel op gastrische epitheelcellen en maagweefsel van ratten onderzocht en veranderingen waargenomen in celviabiliteit, apoptose, ontstekingsresponsen en de expressie van ER-stress- en apoptose-gerelateerde markers. Deze bevindingen suggereren dat clopidogrel-geïnduceerde schade aan het maagslijmvlies geassocieerd is met veranderingen in de expressie van ER-stress- en apoptose-gerelateerde markers. Omdat er echter geen farmacologische rescue- of genetische loss-of-function-experimenten zijn uitgevoerd, vestigen deze bevindingen geen causaal verband tussen ER-stress en apoptose.
Eerdere studies hebben aangetoond dat clopidogrel het herstel van het maagslijmvlies kan belemmeren en de genezing van maagzweren kan vertragen20. In de huidige studie toonden CCK-8-assays aan dat clopidogrel de levensvatbaarheid van GES-1-cellen verminderde, en flowcytometrie toonde een toename van apoptose en een veranderde progressie van de celcyclus aan (Figuur 1). Deze bevindingen zijn consistent met eerdere rapporten over clopidogrel-geïnduceerde apoptose in maagepitheelcellen21. Deze waarnemingen suggereren dat behandeling met clopidogrel geassocieerd is met een verminderde levensvatbaarheid van maagepitheelcellen en verhoogde apoptose, wat kan bijdragen aan beschadiging van het maagslijmvlies11. In het ratmodel toonde H&E-kleuring maagslijmvliesbeschadiging aan na behandeling met clopidogrel (Figuur 2A). De serumspiegels van IL-1β, IL-6 en TNF-α waren ebenfalls significant verhoogd (Figuur 2B–D), wat duidt op een ontstekingsreactie geassocieerd met beschadiging van het maagslijmvlies22. Daarnaast toonden immunohistochemische en immunofluorescentie-analyses een veranderde expressie van ER-stress- en apoptose-gerelateerde markers aan in maagweefsel van clopidogrel-behandelde ratten vergeleken met de controlegroep (Figuur 3, Figuur 4, Figuur 5).
CHOP, ATF5, Bcl-2 en Bax zijn belangrijke regulatoren van cellulaire stressresponsen en apoptose23,24,25,26. In deze studie was een behandeling met clopidogrel geassocieerd met een verhoogde expressie van CHOP en ATF5 en een gewijzigde expressie van Bax en Bcl-2 in zowel GES-1-cellen als maagweefsel van ratten (Figuur 6). Deze bevindingen duiden op gelijktijdige veranderingen in stress- en apoptoserelateerde markers. De huidige studie evalueerde echter enkel expressieveranderingen en heeft niet vastgesteld of deze moleculen direct bemiddelen bij de door clopidogrel geïnduceerde beschadiging van het maagslijmvlies. Hoewel er een verhoogde Bax/Bcl-2-ratio werd waargenomen, heeft de studie bovendien geen directe activatie van de mitochondriale apoptose-route aangetoond. Daarom moeten deze resultaten worden geïnterpreteerd als associaties en niet als bewijs voor een causaal signaleringsmechanisme.
De huidige studie combineert een in vivo ratmodel met explorerende experimenten met directe blootstelling in GES-1 cellen om de morfologische en moleculaire veranderingen geassocieerd met clopidogrel-behandeling te evalueren. Het in vivo model levert het primaire bewijs van gastrische mucosale beschadiging, terwijl de GES-1 experimenten ondersteunend bewijs leveren met betrekking tot cellulaire reacties na directe blootstelling aan de moederverbinding. De combinatie van histopathologische analyse, meting van inflammatoire cytokinen, immunohistochemie, immunofluorescentie, qRT-PCR en Western blotting maakt een uitgebreide beoordeling mogelijk van de morfologische en moleculaire veranderingen die gepaard gaan met gastrische beschadiging. Deze experimentele aanpak kan nuttig zijn voor het onderzoeken van de gastro-intestinale effecten van antiplateletmiddelen en voor het evalueren van potentiële beschermende interventies in toekomstige studies.
Er moeten enkele beperkingen worden erkend. Clopidogrel is een prodrug die hepatische metabole activatie vereist, terwijl directe blootstelling van GES-1-cellen aan de moederverbinding dit proces niet reproduceert of de klinische farmacokinetiek niet volledig weerspiegelt. Daarnaast kunnen de relatief hoge in vitro gebruikte concentraties hebben geleid tot aspecifieke cytotoxiciteit. Daarom moeten de GES-1-experimenten worden beschouwd als verkennend bewijs van cellulaire responsen onder directe blootstellingsomstandigheden. De CCK-8-assay bevatte geen positieve controle voor verminderde celviabiliteit, wat de onafhankelijke verificatie van de assay-prestaties beperkt. De stroomopwaartse mechanismen die verantwoordelijk zijn voor de geobserveerde ER-stressgerelateerde veranderingen zijn niet onderzocht, en er zijn geen farmacologische inhibitie-, gene knockdown- of gene knockout-experimenten uitgevoerd om te bepalen of ER-stress direct de Bax/Bcl-2-balans en apoptose reguleert. Toekomstige studies zouden de moederverbinding moeten vergelijken met de actieve metaboliet, een passend metabool activatiesysteem moeten implementeren en functionele interventie-experimenten moeten uitvoeren om deze relaties te verduidelijken. Bovendien werd er geen goed gevestigde apoptose-inducerende positieve controle opgenomen in de Annexin V-FITC/PI-assay. Hoewel clopidogrel-behandeling geassocieerd was met een toegenomen populatie Annexin V-positieve cellen vergeleken met de vehicle-controle, is de technische prestatie van de apoptose-assay dus niet onafhankelijk geverifieerd met behulp van een positieve-controleconditie. Toekomstige studies zouden een apoptose-inducer, zoals staurosporine, in dezelfde experimentele batch moeten opnemen.
Concluderend veroorzaakte orale clopidogrelbehandeling slijmvliesbeschadiging van de maag bij ratten, wat gepaard ging met veranderingen in ER-stress- en apoptose-gerelateerde markers. Directe blootstelling van GES-1-cellen aan de clopidogrel-moederverbinding verminderde onder de experimentele omstandigheden ook de celviabiliteit en veranderde gerelateerde moleculaire markers. Omdat het celmodel echter geen hepatische bioactivatie reproduceert en relatief hoge concentraties werden gebruikt, kunnen de in vitro-bevindingen niet direct worden geëxtrapoleerd naar klinische blootstelling en kan aspecifieke cytotoxiciteit niet worden uitgesloten. Over het algemeen wijzen de bevindingen erop dat clopidogrel-geïnduceerde slijmvliesbeschadiging van de maag geassocieerd is met veranderingen in de expressie van ER-stress- en apoptose-gerelateerde markers, hoewel verdere mechanistische studies vereist zijn om causale relaties vast te stellen.
Openbaarmakingen
Belangenverstrengeling:
De auteurs verklaren dat zij geen bekende concurrerende financiële belangen of persoonlijke relaties hebben die invloed zouden hebben kunnen uitoefenen op het in deze studie gerapporteerde werk.
Dankbetuigingen
Dit werk werd ondersteund door het project “Fundamental Research on the CHOP/ATF5/Bcl-2 Signaling Pathway in Clopidogrel-Induced Gastric Mucosal Epithelial Cell Apoptosis” (Project No. 2023BWKY009).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Annexin V-FITC/PI-apoptosedetectiekit | Elabscience | E-CK-A211 | Apoptosedetectiekit |
| ATF5-antilichaam | Proteintech | 67066-1-AP | Primair antilichaam |
| BCA-eiwitbepalingskit | Solarbio | PC0020 | Eiwitconcentratiemeting |
| Bax-antilichaam | Proteintech | 50599-1-AP | Primair antilichaam |
| Bcl-2-antilichaam | Proteintech | 26593-1-AP | Primair antilichaam |
| β-actine antilichaam | Proteintech | 66009-1-Ig | Primair antilichaam |
| Blokkeerbuffer | Beyotime | P0252 | Blokkeeroplossing voor Western blot |
| CCK-8 celondertellingskit | KeyGen Biotech | KGA317 | Celviabiliteitsassay |
| cDNA-synthesekit | TransGen Biotech | AU341 | Kit voor synthese van eerste-strengs cDNA met verwijdering van genomisch DNA |
| Kit voor celcyclusdetectie | Lianke Biotechnology | CCS012 | Cellcyclusanalysekit |
| CHOP-antilichaam | Proteintech | 15204-1-AP | Primair antilichaam |
| Clopidogrelhydrogeensulfaat (zuiverheid ≥99%) | Macklin | C874834 | Experimenteel geneesmiddel |
| DAB-chromogeenset | Beyotime | P0201M | Immunohistochemisch substraat |
| Dimethylsulfoxide (DMSO) | MedChemExpress | HY-Y0320C | Oplosmiddel |
| Enhanced Chemiluminescence (ECL)-reagens | Meilunbio | MA0186 | Chemiluminescent substraat |
| Foetaal runderserum (FBS) | Gibco | 10099-141 | Celcultuursupplement |
| GES-1 menselijke gastrische epitheelcellijn | iCell Bioscience | iCell-h062 | Menselijke gastrische epitheellaagcellijn |
| Hematoxyline en eosine (H&E) Kleuringskit | Beyotime | C0105S | Histologische kleuring |
| Met mierikswortelperoxidase (HRP) geconjugeerd secundair antilichaam | Proteintech | RGAM001/RGAR001 | Secundaire antilichaam |
| Waterstofperoxide-oplossing | Absint | ABS9333-100mL | Reagens voor blokkeren van endogene peroxidase |
| IL-1β ELISA-kit | MEIMIAN | MM-0047R2 | Serumcytokine-assay |
| IL-6 ELISA-kit | MEIMIAN | MM-0190R2 | Serumcytokineanalyse |
| Microplaatlezer | Beijing Liuyi Biotechnology | WD-2102B | Absorbantiemeting |
| Penicilline-streptomycine-oplossing | Solarbio | P1400 | Antibioticumoplossing |
| Fosfaatgebufferde zoutoplossing (PBS) | Servicebio | G4202-500ML | 1× PBS |
| Polyvinylideenfluoride (PVDF)-membraan | Millipore | IPVH00010 | Western blot-membraan |
| Verdunner voor primaire antistoffen | Beyotime | P0023A | Antilichaamverdunningsoplossing |
| Eiwitmolecuulgewichtmarker | Gisten | WJ103 | Voorbehandelde eiwitladder |
| Quantitative Real-Time PCR Master Mix (SYBR Green) | CWBio | CW3008 | qPCR-reagens |
| Radio-immunoprecipitatie-assay (RIPA) lysisbuffer | Solarbio | R0010 | Eiwitextractiebuffer |
| RNase A | Lianke Biotechnology | CCS012 | Reagens voor celcyclusanalyse |
| RPMI-1640 medium | Servicebio | G4535-500ML | Basaal celkweekmedium |
| Sprague-Dawley-ratten | Hangzhou Ziyuan Laboratory Animal Technology Co., Ltd. | Geen gegevens beschikbaar | SPF-graad |
| TNF-α ELISA-kit | MEIMIAN | MM-0180R2 | Serumcytokine-analyse |
| Kit voor extractie van totaal RNA | TransGen Biotech | ER501-01 | RNA-extractiekit |
| Trypsine-EDTA-oplossing | Solarbio | T1300 | Cel-dissociatiereagens |
Referenties
- Mills JC, Shivdasani RA. Gastric epithelial stem cells. Gastroenterology. 2011;140(2):412-424.
- Zhou CB, et al. The role of pyroptosis in gastrointestinal cancer and immune responses to intestinal microbial infection. Biochim Biophys Acta Rev Cancer. 2019;1872(1):1-10.
- Boltin D, Niv Y. Pharmacological and alimentary alteration of the gastric barrier. Best Pract Res Clin Gastroenterol. 2014;28(6):981-994.
- Kwon DA, et al. Protective effects of a standardized extract (HemoHIM) using indomethacin- and ethanol/HCl-induced gastric mucosal injury models. Pharm Biol. 2019;57(1):543-549.
- Guo XZ, et al. Effect of Bax, Bcl-2 and Bcl-xL on regulating apoptosis in tissues of normal liver and hepatocellular carcinoma. World J Gastroenterol. 2002;8(6):1059-1062.
- Gomi A, et al. Effect of Bifidobacterium bifidum BF-1 on gastric protection and mucin production in an acute gastric injury rat model. J Dairy Sci. 2013;96(2):832-837.
- Chiou SK, et al. Suppression of growth arrest and DNA damage-inducible 45alpha expression confers resistance to sulindac- and indomethacin-induced gastric mucosal injury. J Pharmacol Exp Ther. 2010;334(3):693-702.
- Chen X, et al. Endoplasmic reticulum stress: molecular mechanism and therapeutic targets. Signal Transduct Target Ther. 2023;8(1):352.
- Lian X, et al. ATF5-regulated mitochondrial unfolded protein response attenuates neuronal damage in epileptic rats by reducing endoplasmic reticulum stress through mitochondrial ROS. Neurochem Res. 2024;49(2):388-401.
- He C, et al. Progression of gastrointestinal injury during antiplatelet therapy after percutaneous coronary intervention: a secondary analysis of the OPT-PEACE randomized clinical trial. JAMA Netw Open. 2023;6(11):e2343219.
- Zongdan J, et al. The mechanism of miR-363-3p/DUSP10 signaling pathway involved in the gastric mucosal injury induced by clopidogrel. Toxicol Mech Methods. 2021;31(2):150-158.
- Chan FK, et al. Clopidogrel versus aspirin and esomeprazole to prevent recurrent ulcer bleeding. N Engl J Med. 2005;352(3):238-244.
- Taha AS, et al. Upper gastrointestinal mucosal abnormalities and blood loss complicating low-dose aspirin and antithrombotic therapy. Aliment Pharmacol Ther. 2006;23(4):489-495.
- Wu HL, et al. Increased endoplasmic reticulum stress response is involved in clopidogrel-induced apoptosis of gastric epithelial cells. PLoS One. 2013;8(9):e74381.
- Forsgard RA, et al. Intestinal permeability to iohexol as an in vivo marker of chemotherapy-induced gastrointestinal toxicity in Sprague-Dawley rats. Cancer Chemother Pharmacol. 2016;78(4):863-874.
- Wu H, et al. Clopidogrel-induced gastric injury in rats is attenuated by stable gastric pentadecapeptide BPC 157. Drug Des Devel Ther. 2020;14:5599-5610.
- Zhu XM, et al. The involvement of endoplasmic reticulum stress response in immune dysfunction of dendritic cells after severe thermal injury in mice. Oncotarget. 2017;8(6):9035-9052.
- Oakes SA, Papa FR. The role of endoplasmic reticulum stress in human pathology. Annu Rev Pathol. 2015;10:173-194.
- Abrignani MG, et al. Gastroprotection in patients on antiplatelet and/or anticoagulant therapy: a position paper of the National Association of Hospital Cardiologists (ANMCO) and the Italian Association of Hospital Gastroenterologists and Endoscopists (AIGO). Eur J Intern Med. 2021;85:1-13.
- Takahashi K, et al. Influence of antiplatelet drugs on gastric ulcer healing after endoscopic submucosal dissection in patients with early gastric cancer. DEN Open. 2025;5(1).
- Wu H, et al. Role of MKP-5-p38/MAPK pathway in clopidogrel-induced gastric mucosal epithelial cells apoptosis and tight junction dysfunction. Am J Transl Res. 2020;12(5):1741-1753.
- Fu X, et al. Protective effect of teprenone on gastric mucosal injury induced by dual antiplatelet therapy in rats. Am J Transl Res. 2021;13(4):2702-2709.
- Oyadomari S, Mori M. Roles of CHOP/GADD153 in endoplasmic reticulum stress. Cell Death Differ. 2004;11(4):381-389.
- Sears TK, Angelastro JM. The transcription factor ATF5: role in cellular differentiation, stress responses, and cancer. Oncotarget. 2017;8(48):84595-84609.
- Zhang Y, et al. Puerarin attenuates neurological deficits via Bcl-2/Bax/cleaved caspase-3 and Sirt3/SOD2 apoptotic pathways in subarachnoid hemorrhage mice. Biomed Pharmacother. 2019;109:726-733.
- Manas A, et al. Immunohistochemical detection of the pro-apoptotic BaxΔ2 protein in human tissues. Histochem Cell Biol. 2020;154(1):41-53.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar