Deze studie onderzoekt de therapeutische effecten van de Bushen-Jianpi-Qingchang-formule en de sub-formules daarvan op colitis bij ratten, en onthult via multi-omics-analyse hun regulatiemechanismen die gericht zijn op de metabole as tussen darmmicrobiota en galzuren.
Onderzoeksartikel
Bushen Jianpi Qingchang-formule verbetert colitis bij ratten door regulatie van het galzuurmetabolisme en de darmmicrobiota
In dit artikel
Samenvatting
Samenvatting
Traditionele Chinese geneeskunde (TCM) wordt op grote schaal toegepast bij de behandeling van colitis ulcerosa (CU) vanwege de bewezen werkzaamheid en het gunstige veiligheidsprofiel. De kernpathogenese van chronische refractaire CU omvat een deficiëntie van milt en nieren gepaard gaand met accumulatie van vochtigheid-hitte in de darmen, en de Bushen-Jianpi-Qingchang-formule (BJQF) is een klinisch gevalideerde samengestelde voorschrift voor deze aandoening. Deze studie had tot doel de therapeutische effecten van BJQF en de drie afgeleide sub-formules (Bushen-formule, BSF; Jianpi-formule, JPF; Qingchang-formule, QCF) te onderzoeken bij dextraansulfaatnatrium (DSS)-geïnduceerde colitis bij ratten, en hun regulerende effecten op fecale galzuur (BA)-profielen en darmmicrobiële gemeenschappen te karakteriseren. De fecale bacteriële samenstelling en BA-concentraties bij ratten met DSS-geïnduceerde CU werden gekwantificeerd via 16S rRNA-gensequencing en vloeistofchromatografie-tandemmassaspectrometrie (LC-MS/MS), en de potentiële associatie tussen darmmicrobiota en BA-metabolisme werd geanalyseerd. BJQF verbeterde de colorectale ontsteking en ulceratie in het CU-model significant. Er werden duidelijke veranderingen in bacteriële diversiteit en samenstelling vastgesteld tussen ratten met colitis en gezonde controles. De associatie tussen differentiële bacteriën en BA's was gecentreerd rond 23-deoxycholzuur (23-DCA) als een sleutelmetabole knoop. Opmerkelijk is dat taurolithocholzuur-3-sulfaat (TLCA-3S) en lithocholzuur-3-sulfaat (LCA-3S) kunnen dienen als potentiële biomarkers voor werkzaamheid. De JPF-subformule vertoonde een werkzaamheid die het meest vergelijkbaar was met de volledige BJQF. Toediening van BJQF en de afgeleide formules verbetert effectief de histopathologische schade, ontsteking, darmmicrobiële dysbiose en BA-metabole verstoringen bij CU-ratten, wat een mechanistische basis biedt voor samengestelde TCM-therapie.
Inleiding
Ulceratieve colitis (UC), een belangrijke vorm van inflammatoire darmziekte (IBD), wordt gekenmerkt door chronische, continue aspecifieke ontsteking die beperkt blijft tot het colorectale slijmvlies. Patiënten met UC vertonen klinische symptomen waaronder diarree, buikpijn, onbedoeld gewichtsverlies en bloederige of purulente ontlasting, wat de kwaliteit van leven ernstig beperkt. De pathogenese van UC omvat omgevings-, genetische, microbiële en immuunfactoren. UC ontwikkelt zich doorgaans na een onbalans in de darmmicrobiota, en deze dysbiose kan de progressie van UC aanzienlijk versnellen1. Uit toenemend bewijs is gebleken dat de metabolische as tussen darmmicrobiota en galzuren (BA) een kernregulerende module is in de pathogenese van UC. Galzuur-dysmetabolisme is een erkend kenmerk van beschadiging van het darmmucosa bij IBD. Secundaire BA's worden uitsluitend biosynthetiseerd uit gastheer-afgeleide primaire BA's door de darmmicrobiota, die sleutelenzymen zoals 7α-dehydroxylase tot expressie brengen voor deze biotransformatie. De fecale galzuurpool dient daarom als een ideale functionele indicator om de remodellering van het microbioom als gevolg van TCM-behandeling te weerspiegelen.
Deze secundaire galzuren fungeren als cruciale signaalmoleculen voor het behoud van de intestinale immuunhomeostase, de integriteit van de slijmvliesbarrière en het overleven van epitheelcellen2. Afwijkingen in deze as, waaronder een tekort aan secundaire galzuren door microbiële dysbiose en verstoorde galzuursignalering, triggeren direct intestinale pro-inflammatoire reacties en barrièrefunctiestoornissen, waardoor dit een veelbelovend therapeutisch doelwit is voor de behandeling van UC. De darmmicrobiota speelt een cruciale rol bij de ontwikkeling van UC en beïnvloedt de gastheer via metabolische producten, zoals galzuren die door fermentatiereacties worden gegenereerd. Abnormale veranderingen in de darmmicrobiota en het galzuurmetabolisme zijn nauw geassocieerd met UC3. Omdat de darmmicrobiota de productie van secundaire galzuren medieert, kunnen veranderingen in de microbiële samenstelling en abundantie het galzuurmetabolisme verstoren en bijdragen aan de ontwikkeling van IBD4.
TCM is op grote schaal geadopteerd voor het beheer van UC vanwege de effectiviteit en veiligheid bij langetermijnbehandeling, als alternatief voor of aanvulling op ontstekingsremmende of immunosuppressieve middelen5. Het verwarmen en tonificeren van de milt en nieren, het reinigen van de darmen en het verdrijven van vocht zijn de kerntherapeutische principes voor UC6. Volgens de TCM-theorie is de kernpathogenese van aanhoudende UC een deficiëntie van de milt en nieren (Fu-Zheng, versterking van de vitale qi) gecombineerd met accumulatie van vocht-hitte in de darmen (Qu-Xie, eliminatie van pathogene factoren), en de synergetische toepassing van deze twee strategieën is essentieel voor een effectieve behandeling van UC.
Eerdere experimentele studies hebben bevestigd dat JPF en QCF, twee kernsubformuleringen van BJQF, therapeutische effecten uitoefenen tegen UC. JPF verbetert mucosale inflammatie en dysfunctie van de intestinale epitheliale barrière via de NF-κB/HIF-1α-signaleringsroute7, terwijl QCF de homeostase van het darmmicrobioom-metabolisme herstelt, de intestinale epitheliale barrière beschermt en de NLRP3/IL-1β-route reguleert8. Om de specifieke biologische bijdragen van de functionele modules Fu-Zheng en Qu-Xie aan de darmmicrobioom-BA-as te ontleden, is deze studie ontworpen om de volledige BJQF-formulering en drie ontbonden subformuleringen op te nemen: BSF (Bushen-formulering, milt-nier versterkend, zuivere Fu-Zheng), JPF (Jianpi-formulering, milt stimulerend, kern Fu-Zheng) en QCF (Qingchang-formulering, darmvochtigheid-hitte klarend, zuivere Qu-Xie). Dit experimentele ontwerp maakt het mogelijk om de synergetische en onafhankelijke effecten van elke functionele module bij de behandeling van UC te ontleden, wat cruciaal is voor de vertaling van TCM-samengestelde voorschriften naar evidence-based therapie.
De werkhypothese is dat BJQF DSS-geïnduceerde colitis verbetert door de samenstelling van het darmmicrobioom te remodelleren en het galzuurmetabolisme te normaliseren, en dat de Jianpi-module fungeert als de kernfunctionele component die de regulerende effecten op de darmmicrobiota-BA-as aanstuurt. Deze studie is ontworpen om het "verbinding-naar-module"-mechanisme van BJQF systematisch te analyseren. Door de volledige formule en de bijbehorende gerichte fysiologische submodules te evalueren, streeft de studie ernaar de biologische synergie van deze TCM-verbinding te ontcijferen en een moderne farmacologische basis te bieden voor de behandeling van IBD door regulering van de darmmicrobiota-galzuurmetabole as. Hierin worden de therapeutische werkzaamheid van de volledige BJQF en de drie daaruit voortvloeiende functionele formules tegen DSS-geïnduceerde UC systematisch vergeleken. Gezien de cruciale rol van de darmmicrobiota-galzuurmetabole as in de pathogenese van UC, ontleedt dit werk het synergetische mechanisme van verbinding-naar-module van BJQF, verduidelijkt het de specifieke regulerende bijdragen van de Bushen-, Jianpi- en Qingchang-modules, en karakteriseert het de remodellerende effecten van elke module op de samenstelling van het darmmicrobioom en de fecale galzuurprofielen. De hoofddoelstellingen zijn het onthullen van de moderne biologische basis van BJQF bij het verlichten van UC, het identificeren van belangrijke microbiële-metabole doelwitten voor TCM-interventie, en het bieden van een mechanistische referentie voor de rationele toepassing en translationele research van samengestelde TCM-voorschriften bij IBD.
Protocol
Voor het onderzoek werden vierenvijftig gezonde mannelijke Sprague-Dawley ratten met een gewicht van 200 ± 20 g gebruikt. Alle dieren werden gehuisvest onder specifieke pathogenvrije omstandigheden met vrije toegang tot een standaard pelletdieet en water, en werden gedurende 1 week voor het experiment geacclimatiseerd. Alle procedures met betrekking tot dierenwelzijn en experimenten werden uitgevoerd in overeenstemming met de Guide for Care and Use of Laboratory Animals, uitgegeven door het Ministerie van Wetenschap en Technologie van China. De studie is goedgekeurd door de Ethische Commissie voor Dieren van de Nanjing University of Chinese Medicine onder goedkeuringsnummer 2023DW-029-01. Volledige details over de herkomst van de dieren en de gebruikte huisvestingsmaterialen zijn opgenomen in de Tabel met Materialen.
Bereiding van de TCM-formule
De volledige Bushen-Jianpi-Qingchang-formule (BJQF) werd samengesteld met negen kruidbestanddelen in vooraf bepaalde doseringen: 15 g Astragali Radix, 10 g geroosterde Atractylodis Macrocephalae Rhizoma, 10 g Scutellariae Radix, 4 g Coptidis Rhizoma, 10 g Sanguisorbae Radix, 6 g Aucklandiae Radix, 5 g Glycyrrhizae Radix, 15 g Psoraleae Fructus en 15 g Alpiniae Oxyphyllae Fructus. Alle ruwe kruidenmaterialen werden 1 h geweekt in normale zoutoplossing, gevolgd door 1 h koken (decoctie) om een eindvolume van 1500 mL te verkrijgen. Drie afgeleide subformuleringen werden bereid met een identiek decoctieprotocol. De Bushen-formule (BSF) bevatte 15 g Psoraleae Fructus en 15 g Alpiniae Oxyphyllae Fructus, gekookt tot een eindvolume van 500 mL. De Jianpi-formule (JPF) bestond uit 15 g Astragali Radix, 10 g geroosterde Atractylodis Macrocephalae Rhizoma en 5 g Glycyrrhizae Radix, met een eindvolume van 500 mL. De Qingchang-formule (QCF) bestond uit 10 g Scutellariae Radix, 4 g Coptidis Rhizoma, 10 g Sanguisorbae Radix en 6 g Aucklandiae Radix, eveneens aangepast aan een eindvolume van 500 mL. De volledige fabrikantspecificaties en batchnummers voor alle kruidenmaterialen zijn opgenomen in de Tabel met materialen. In de hoofdtekst is consistent gebruikgemaakt van generieke kruidennomenclatuur; fabrikantspecifieke details zijn uitsluitend beperkt tot de Tabel met materialen.
Inductie van colitis en experimentele groepering
Ratten werden willekeurig verdeeld over zes experimentele groepen: Controlegroep (n = 6): normaal drinkwater + intragastrische normale zoutoplossing. UC-modelgroep (n = 6): 3,5% (wt/vol) DSS drinkwater + intragastrische normale zoutoplossing. BJQF-behandelingsgroep (n = 8): 3,5% DSS drinkwater + intragastrische BJQF (0,6 g/kg lichaamsgewicht). BSF-behandelingsgroep (n = 8): 3,5% DSS drinkwater + intragastrische BSF (0,6 g/kg lichaamsgewicht). JPF-behandelingsgroep (n = 8): 3,5% DSS drinkwater + intragastrische JPF (0,6 g/kg lichaamsgewicht). QCF-behandelingsgroep (n = 8): 3,5% DSS drinkwater + intragastrische QCF (0,6 g/kg lichaamsgewicht).
Experimentele colitis werd geïnduceerd door 3,5% DSS in het drinkwater gedurende 10 opeenvolgende dagen; de controlegroep kreeg gedestilleerd water zonder DSS. De dosering van elke TCM-formule (0,6 g/kg) werd omgezet van de klinisch effectieve volwassendosis naar de equivalente dosis voor ratten met behulp van de methode voor normalisatie van het lichaamsoppervlak (Meeh-Rubner-formule). Omdat het gaat om een studie in de ontdekkingsfase die zich richt op de vergelijking van formules, werd een enkele klinisch equivalente dosis gehanteerd. Vanaf dag 1 werd elke TCM-formule eenmaal daags intragastrisch toegediend. De controle- en modelgroepen kregen hetzelfde volume normale zoutoplossing (10 mL/kg). Op dag 11 werden de ratten geofferd via cervicale dislocatie. Serum, fecesmonsters en colonweefsels werden verzameld voor analyse. Het lichaamsgewicht werd dagelijks gemeten. Alle groepen waren oorspronkelijk ontworpen met n = 8. Tijdens de DSS-inductie stierven er in zowel de controle- als de modelgroep 2 ratten als gevolg van ernstige colitis, wat resulteerde in een uiteindelijke n = 6 voor deze twee groepen. Een post-hoc poweranalyse bevestigde dat de uiteindelijke steekproefomvang een statistische power van ≥ 0,8 bereikt voor alle primaire uitkomstmaten (histologische score, belangrijkste cytokinen, lichaamsgewicht), waarmee aan de standaard statistische vereisten wordt voldaan.
Meting van inflammatoire cytokoneconcentraties
Serumspiegels van IL-1β, IL-10 en TNF-α werden gekwantificeerd met behulp van commerciële ELISA-kits, waarbij strikt werd voldaan aan de protocollen van de fabrikant. Optische dichtheidswaarden werden uitgelezen met een automatische microplate-reader. Statistische analyse: eenweg-ANOVA voor algemene groepsverschillen, gevolgd door Benjamini-Hochberg FDR-correctie voor post-hoc paarsgewijze vergelijkingen, in overeenstemming met omics-data-analyse.
Histopathologische evaluatie
Colonweefselmonsters werden gefixeerd in 10% formaline, gedehydrateerd, ingebed in paraffine, gesneden en gekleurd met hematoxyline en eosine (HE). De histologische scoring werd uitgevoerd met behulp van het gemodificeerde Cooper colitis-scoringsysteem, een gevalideerde semi-kwantitatieve rubric voor experimentele colitis9. De scoring omvat vier dimensies: inflammatoire infiltratie, cryptstructuurbeschadiging, mucosaal oedeem en de omvang van ulcera (totale score 0–12). Blinderingsverklaring: Alle coupes werden gede-identificeerd met numerieke codes vóór de scoring. Twee onafhankelijke pathologen, die niet op de hoogte waren van de groepstoewijzingen, scoorden elke coupe onafhankelijk. De uiteindelijke score was het gemiddelde van de twee scores; discrepanties van ≥ 2 punten werden opgelost door een derde senior patholoog. Eenrichtings-ANOVA met Benjamini-Hochberg FDR-correctie voor paarsgewijze vergelijkingen, in overeenstemming met andere fenotypische gegevens.
Monstername en DNA-extractie
Verse fecale monsters van ratten werden verzameld in steriele centrifugebuisjes van 1 mL, onmiddellijk ingevroren bij −80 °C en getransporteerd op droogijs. Bacterieel genomisch DNA uit feces werd geëxtraheerd uit 250 mg feces met behulp van de DNA Isolation Kit volgens de instructies van de fabrikant. De DNA-concentratie werd gekwantificeerd via een spectrofotometer en de integriteit werd geverifieerd via 0,8% agarosegelelektroforese. Tijdens de extractie en kwantificering werd een negatieve buffercontrole meegenomen. De extracten werden bewaard bij -20 °C tot aan gebruik.
16S rRNA-gensequencing en bio-informatische analyse
PCR-amplificatie was gericht op de V3–V4 hypervariabele regio's (338F–806R) van het 16S rRNA-gen. PCR-producten werden gezuiverd en gesequenced op het Illumina MiSeq-platform met 2 × 300-bp paired-end sequencing. Na kwaliteitsfiltering werd per monster gemiddeld 68.450 ± 28.297 hoogwaardige clean reads verkregen (max 158.361, min 28.294). Sequenties werden geclusterd in OTU's bij een gelijkenis van 97%. Rarefactiecurves, rijkdomsindices en diversiteitsindices werden berekend. Taxonomische annotatie werd uitgevoerd met de RDP Classifier. PCoA op basis van UniFrac-afstanden en hiërarchische clustering werden uitgevoerd in R om de gelijkenis van de gemeenschappen te beoordelen. LEfSe-analyse werd uitgevoerd op het Galaxy-platform om taxa met een differentieel abundantieniveau te identificeren (drempelwaarden: LDA > 3, Kruskal-Wallis p < 0,05, post-hoc Wilcoxon p < 0,05). Voor meervoudige vergelijkingen van microbiële abundanties werd de Benjamini-Hochberg FDR-correctie toegepast; p(FDR) < 0,05 werd als significant beschouwd.
LC-MS/MS-analyse van fecale galzuren
Een fecale monstername van 20 mg werd gehomogeniseerd met 200 µL methanol. Na centrifugatie werd het supernatant geconcentreerd, gereconstitueerd in 100 µL 50% waterig methanol en geanalyseerd via LC-MS/MS. Het detectiesysteem bestond uit een Shimadzu UPLC-systeem en een Applied Biosystems 6500 QTRAP MS/MS-systeem. Kwalitatieve en kwantitatieve analyses werden uitgevoerd met behulp van kalibratiecurves van galzuurstandaarden. PCA werd gebruikt om de scheiding van het metabole profiel te beoordelen. Differele galzuren werden gedefinieerd als VIP ≥ 1 en fold change ≥ 2 of ≤ 0,5. Violin plots werden gebruikt om de distributies van differentiële BA te visualiseren. Voor meervoudige vergelijkingen werd de Benjamini-Hochberg FDR-correctie toegepast, in overeenstemming met de analyse van microbiële gegevens.
Statistische analyse
De Spearman-correlatie werd berekend met de cor-functie in R. De significantie van de correlatie werd getest met de corPvalueStudent-functie uit het WGCNA R-pakket. Fenotypische gegevens worden uitgedrukt als gemiddelde ± standaarddeviatie (Gemiddelde ± SD). Voor alle vergelijkingen tussen meerdere groepen (fenotypisch, microbiëel, metabolisch) werd een éénweg ANOVA toegepast met Benjamini-Hochberg FDR-correctie voor post-hoc testen. Een gecorrigeerde p < 0,05 werd beschouwd als statistisch significant. Alle analyses werden uitgevoerd in GraphPad Prism 7.00 en R 4.2.0. De post-hoc powerberekening van de steekproefomvang werd uitgevoerd met G*Power 3.1.
Resultaten
TCM-formules verminderen ontsteking en colonbeschadiging bij DSS-geïnduceerde colitis
De beschermende werkzaamheid van de TCM-formules werd eerst geëvalueerd aan de hand van veranderingen in het lichaamsgewicht. In vergelijking met de controlegroep vertoonde de UC-modelgroep een aanhoudend gewichtsverlies. BJQF, BSF, JPF en QCF verminderden allemaal significant het door DSS geïnduceerde gewichtsverlies (Figuur 1A). HE-kleuring onthulde een intacte colonmucosa en geen ontsteking bij de controles. Daarentegen vertoonde het colonweefsel van de modelgroep ernstige epitheliale distortie, cryptdestructie en uitgebreide infiltratie van ontstekingscellen in de mucosa en submucosa. Alle TCM-behandelingen bevorderden het weefselherstel en verminderden de ontsteking, waarbij BJQF de meest uitgesproken verbetering liet zien (Figuur 1B–C). Kwantitatieve histologische scoring bevestigde dat TCM de histopathologische schade significant verminderde (p < 0,05).
BJQF, BSF, JPF en QCF verlaagden allemaal het serum IL-1β (Figuur 1D) en TNF-α (Figuur 1F) in verschillende mate. De IL-10-spiegels in de behandelgroepen bereikten niet het niveau van de controlegroep, maar waren significant hoger dan in de modelgroep (Figuur 1E). Deze resultaten geven aan dat TCM-formules DSS-geïnduceerde intestinale inflammatie remmen.
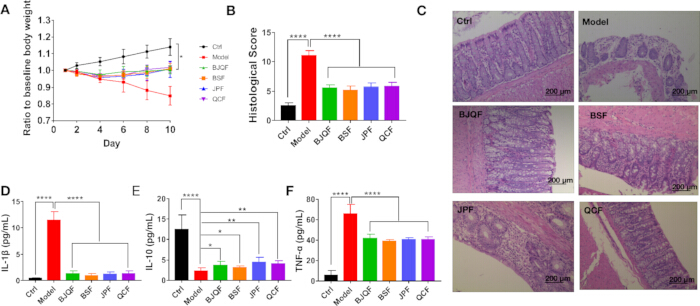
Figuur 1: Therapeutische effecten van BJQF en de afgebroken sub-formules op DSS-geïnduceerde colitis bij ratten. (A) Dynamische veranderingen in de verhouding van het lichaamsgewicht ten opzichte van de baseline in elke groep gedurende de experimentele periode van 10 dagen; (B) Kwantitatieve histologische scores van colonweefsels over alle experimentele groepen; (C) Representatieve met hematoxyline-eosin (HE) gekleurde doorsneden van colonweefsel van elke groep (schaalbalk = 200 µm); (D–F) Serumconcentraties van inflammatoire cytokinen in elke groep: (D) IL-1β, (E) IL-10, (F) TNF-α. Gegevens worden uitgedrukt als gemiddelde ± SD. *p < 0.05, **p < 0.01, ****p < 0.0001. Klik hier om een grotere versie van deze figuur te bekijken.
TCM-behandeling herstructureert de samenstelling van de darmmicrobiota bij UC-ratten
Na kwaliteitsfiltering werd gemiddeld 68.450 ± 28.297 hoogwaardige clean reads per monster verkregen. TCM-behandeling veranderde de bacteriële α-diversiteit (Chao1-index, Afbeelding 2A). BJQF reduceerde de verhoogde α-diversiteit bij UC-ratten significant (p(FDR) < 0,05). Van de subformuleringen reduceerde JPF de diversiteit significant (p(FDR) < 0,05), terwijl BSF en QCF geen significant effect vertoonden. Voor de β-diversiteit liet een ongewogen PCoA van UniFrac-afstanden een duidelijke scheiding tussen de groepen zien, wat aangeeft dat TCM de algehele microbiële samenstelling heeft hervormd (Afbeelding 2B). Hiërarchische clustering demonstreerde verder een duidelijk onderscheid tussen de model- en behandelingsgroepen (Afbeelding 2C).
In totaal werden 13 phyla, 22 klassen, 36 orden, 65 families en 158 genera gedetecteerd. Op phylum-niveau domineerden Firmicutes, Bacteroidetes, Actinobacteria, Verrucomicrobia en Proteobacteria (>99% totale abundantie, Figuur 2D). Firmicutes was dominant in de controlegroep (86,98%), nam significant af bij UC (p(FDR) < 0,05) en werd hersteld door TCM (p(FDR) < 0,05), waarbij BJQF het sterkste effect vertoonde. Bacteroidetes en Proteobacteria waren significant verhoogd bij UC en werden door alle TCM-formules teruggebracht. Op genus-niveau (abundantie >1%, Figuur 2E) was Lactobacillus dominant in de controlegroep (59,77%), sterk verminderd bij UC (3,57%, p(FDR) < 0,05) en hersteld door TCM (p(FDR) < 0,05). BJQF en JPF vertoonden sterkere effecten op het herstel van Lactobacillus. UC leidde ook tot een toename van Bacteroides, Ruminococcus_2, Bifidobacterium en Blautia, en een afname van Enterorhabdus en Corynebacterium_1 — waarvan het meeste werd omgekeerd door TCM. Over het algemeen verbeterden alle formules de met UC geassocieerde microbiële dysbiose, waarbij BJQF en JPF de meest uitgesproken effecten vertoonden.
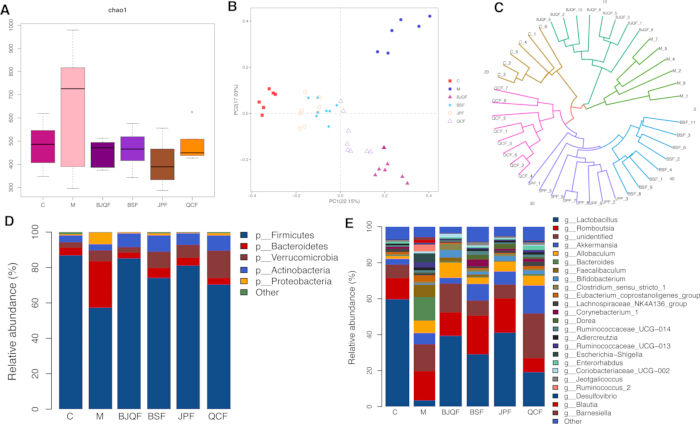
Figuur 2: De samenstelling van het darmmicrobioom in groepen. (A) Index van bacteriële α-diversiteit beoordeeld met behulp van Chao 1 (p(FDR) < 0,05 vs Model); (B) PCoA van UniFrac-afstanden gebaseerd op OTU-samenstelling en abundanties in verschillende groepen; (C) Hiërarchische clusteringanalyse gebaseerd op de distantiematrix; (D) Relatieve abundantie op fylum-niveau (p(FDR) < 0,05 vs Model); en (E) Relatieve abundantie op genus-niveau (p(FDR) < 0,05 vs Model). Klik hier om een grotere versie van deze figuur te bekijken.
LEfSe identificeert UC-geassocieerde en TCM-geassocieerde differentiële taxa
LEfSe-analyse werd uitgevoerd om taxa te identificeren die differentieel verrijkt waren tussen de groepen (LDA > 3, p < 0.05, Figuur 3). UC-verrijkte taxa omvatten Bacteroidaceae, Bacteroides, Clostridiales, Clostridia, Bacteroidia, Bacteroidales, Bacteroidetes, Faecalibaculum, and Ruminococcaceae, voornamelijk afkomstig van Bacteroidetes en Firmicutes. Na TCM-behandeling behoorden de meeste BJQF-verrijkte taxa tot de Firmicutes, met alleen Bifidobacteriaceae, Bifidobacteriales en Bifidobacterium uit de Actinobacteria. BSF-verrijkte taxa waren eveneens voornamelijk Firmicutes. JPF-verrijkte taxa zoals Turicibacter en Dorea behoorden tot de Firmicutes. QCF vertoonde de sterkste verrijking van Verrucomicrobia (inclusief Akkermansia), wat duidt op een hoge gevoeligheid van deze phylum voor QCF-interventie. In het algemeen was Firmicutes de meest responsieve phylum op BJQF, BSF en JPF.
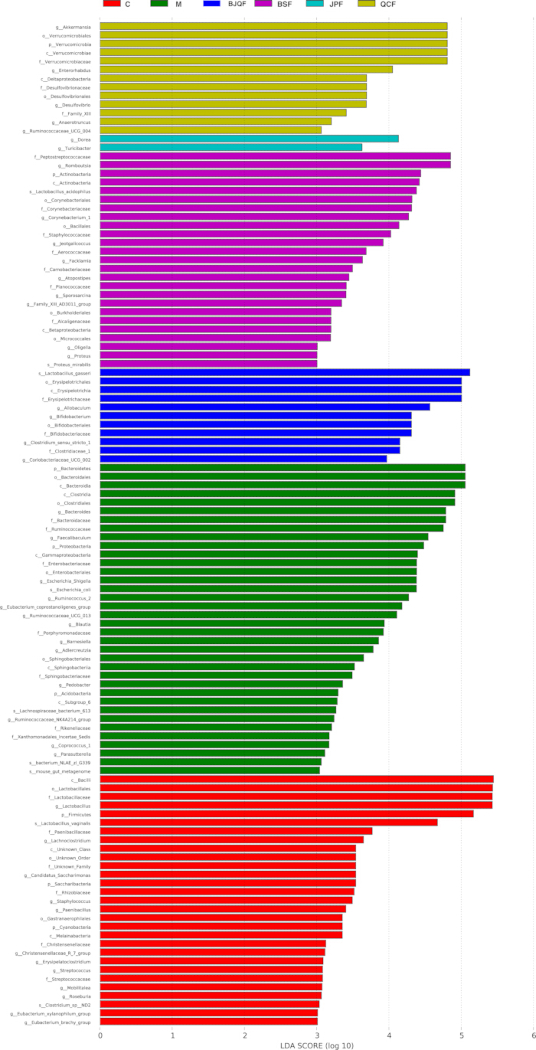
Figuur 3: LEfSe identificeerde de OTU's met de grootste verschillen in abundantie tussen verschillende groepen. Significante verschillen in LDA-scores (p < 0,05) werden vastgesteld tussen klassen (Kruskal-Wallis test) en tussen subklassen (Wilcoxon test). Differentiële taxa werden bepaald op basis van een LDA-drempelscore van > 3 en een statistisch significantieniveau van 0,05. (p: phylum c: klasse o: orde f: familie g: genus). Klik hier om een grotere versie van deze figuur te bekijken.
TCM-interventie normaliseert fecale galzuurprofielen bij UC-ratten
Gezien de malabsorptie van galzuren (BA) bij IBD, gebruikten de auteurs LC-MS/MS om fecale BA's te kwantificeren. PCA toonde een duidelijke scheiding tussen de controlegroep en de modelgroep, terwijl alle behandelingsgroepen dichter bij de controles clusterden, wat wijst op een gedeeltelijke normalisatie van het BA-metabolisme (Figuur 4A). De meest veranderde BA's in de modelgroep waren verhoogde LCA-3S en verlaagde GDCA (Figuur 4B). Na behandeling waren de meest opgereguleerde BA's ILCA (BJQF), GCDCA (BSF), DLCA (JPF) en GCDCA (QCF); de meest neergereguleerde BA's waren TLCA-3S (BJQF), LCA-3S (BSF), LCA-3S (JPF) en TLCA-3S (QCF) (Figuur 4C–F). Violin plots visualiseerden gemeenschappelijke differentiële BA's tussen de groepen (Figuur 5). Opvallend is dat alle TCM-formules 23-DCA, 3-oxo-DCA en DLCA verhoogden, en HCA, LCA-3S, TCA en TLCA-3S verlaagden.
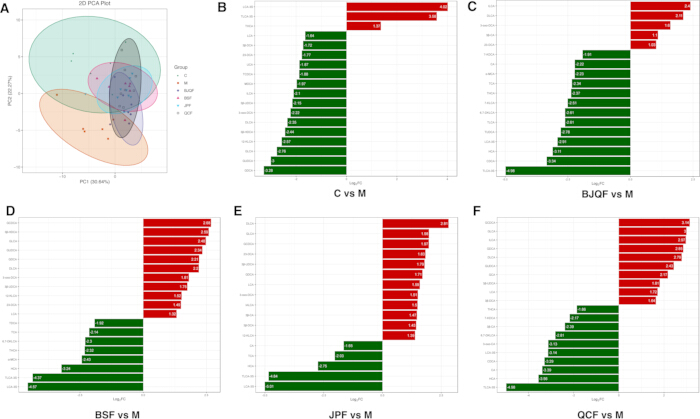
Figuur 4: TCM-formules reguleerden de door DSS geïnduceerde galzuurstoornis in het UC-model. (A) PCA-plot van galzuur van de Controle-, Model-, BJQF-, BSF-, JPF- en QCF-groepen. (B) Staafdiagram van de fold change in Model versus Controle. (C) Staafdiagram van de fold change in BJQF versus Model. (D) Staafdiagram van de fold change in BSF versus Model. (E) Staafdiagram van de fold change in JPF versus Model, en (F) Staafdiagram van de fold change in QCF versus Model. Klik hier om een grotere versie van deze figuur te bekijken.
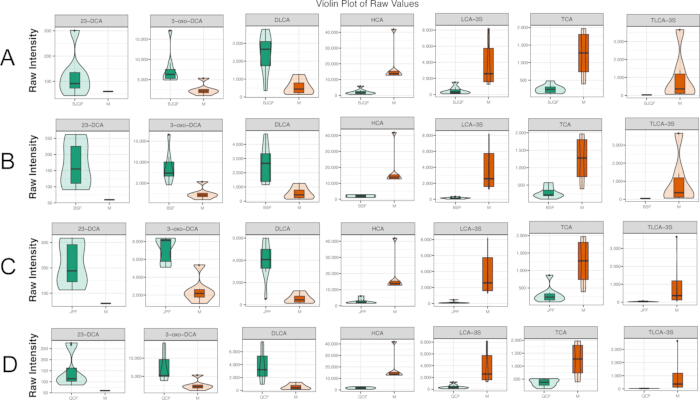
Figuur 5: Violin plot van differentiële BA's in elke vergelijkingsgroep. (A) Differentiële BA's in BJQF versus Model. (B) Differentiële BA's in BSF versus Model. (C) Differentiële BA's in JPF versus Model en (D) Differentiële BA's in QCF versus Model. Klik hier om een grotere versie van deze figuur te bekijken.
Correlatie tussen fecale galzuren en de abundantie van darmmicroben
Er is een Spearman-correlatieanalyse uitgevoerd tussen differentiële phyla en differentiële BA's (Figuur 6A–F, Figuur 7A–D). Chord-diagrammen tonen correlaties met |r| ≥ 0.8 (Figuur 6B, 6D, 6F). In de vergelijking tussen model en controle was 23-DCA positief gecorreleerd met Saccharibacteria en Firmicutes, en negatief gecorreleerd met Proteobacteria en Bacteroidetes (Figuur 6B). In de vergelijking tussen BJQF en model was Proteobacteria geassocieerd met TLCA-3S, LCA-3S, TCA, α-MCA, 6,7-DKLCA, HCA, CDCA en THCA (Figuur 6D). In de vergelijking tussen BSF en model waren Proteobacteria positief gecorreleerd met TDCA, 6,7-DKLCA en LCA-3S; Saccharibacteria waren positief gecorreleerd met GUDCA en 23-DCA (Figuur 6F).
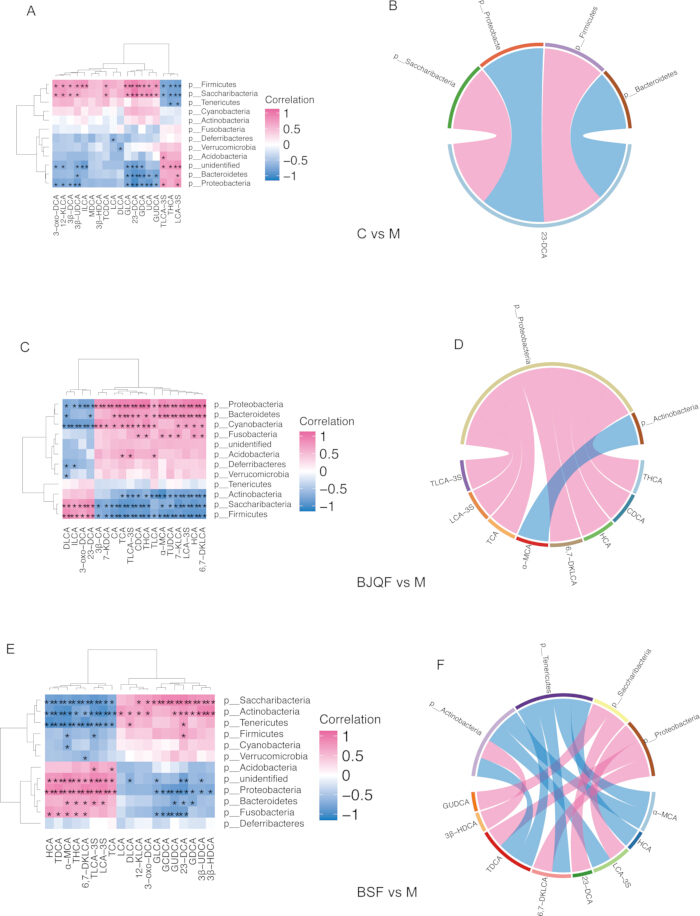
Figuur 6: Correlaties tussen differentiële fecale galzuren (BAs) en de abundantie van differentiële bacteriën op fylum-niveau. (A, C, E) Spearman-correlatieanalyses voor respectievelijk de groepen Controle vs. Model, BJQF vs. Model en BSF vs. Model. (B, D, F) Overeenkomstige chord-diagrammen die sterke correlaties (|r| ≥ 0,8) illustreren voor respectievelijk de groepen Controle vs. Model, BJQF vs. Model en BSF vs. Model. Klik hier om een grotere versie van deze figuur te bekijken.
Chord-diagrammen tonen correlaties met |r| ≥ 0,8 (Figuur 7B, 7D). In de vergelijking tussen JPF en het model was Saccharibacteria negatief geassocieerd met TLCA-3S, LCA-3S en HCA, en positief gecorreleerd met 23-DCA (Figuur 7B). In de vergelijking tussen QCF en het model was Saccharibacteria negatief gecorreleerd met HCA, CA, LCA-3S, THCA en TLCA-3S, en positief gecorreleerd met 23-DCA (Figuur 7D). Deze resultaten geven aan dat verschillende TCM-formules het interactienetwerk tussen bacteriën en galzuren moduleren via verschillende patronen.
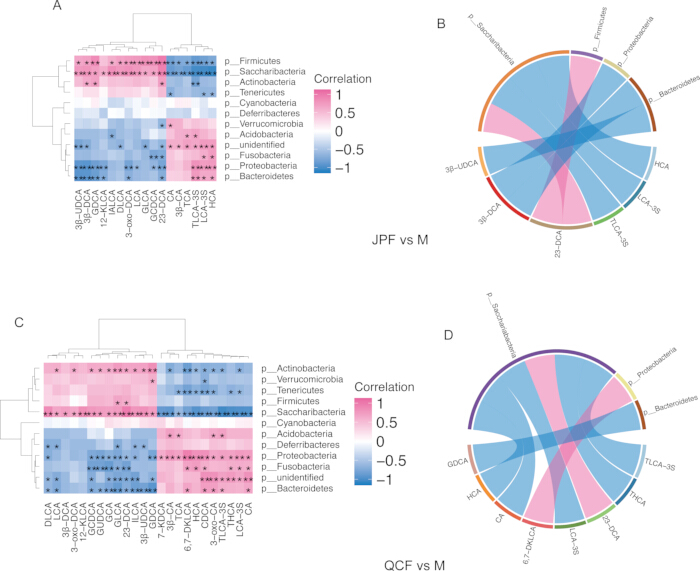
Figuur 7: Correlaties tussen fecale differentiële galzuren (BAs) en de abundantie van differentiële bacteriën. (A, C) Spearman-correlatieanalyses voor respectievelijk de JPF- versus Model- en QCF- versus Model-groepen. (B, D) Overeenkomstige chord-diagrammen die sterke correlaties (|r| ≥ 0,8) illustreren voor respectievelijk de JPF- versus Model- en QCF- versus Model-groepen. Rood geeft positieve correlaties aan, terwijl blauw negatieve correlaties aangeeft. p < 0,05, p < 0,01. Klik hier om een grotere versie van deze figuur te bekijken.
DATAbeschikbaarheid:
Alle ruwe gegevens zijn geüpload naar de NCBI Sequence Reads Archive (SRA) database (toegangsnummer: PRJNA749732). https://www.ncbi.nlm.nih.gov/bioproject/PRJNA749732
Discussie
Deze studie onderzoekt het therapeutische mechanisme van BJQF en de ontlede sub-formules bij het verlichten van DSS-geïnduceerde UC via de darmmicrobiota–galzuur metabole as. Deze multi-omics analyse suggereert dat BJQF anti-colitis effecten uitoefent door UC-geassocieerde microbiële dysbiose te herstellen en de fecale BA-pool te normaliseren. De sub-formules vertonen verschillende module-specifieke regulerende effecten, waarbij JPF een werkzaamheid vertoont die het meest vergelijkbaar is met de volledige formule, wat de kernrol van de Jianpi-strategie onthult. De auteurs identificeren daarnaast 23-DCA als een sleutel-BA-knoop die microbiële remodellering en de verbetering van UC verbindt, en TLCA-3S/LCA-3S als potentiële biomarkers voor werkzaamheid.
De door BJQF-gemedieerde herstel van microbiële dysbiose is potentieel geassocieerd met de normalisatie van de BA-pool en verminderde inflammatie. UC wordt aangedreven door dysregulatie van het immuun-microbiota-metabolisme-netwerk, en een onbalans in de kernfyla is een typisch kenmerk bij zowel patiënten als diermodellen10. Deze resultaten bevestigen dat DSS-geïnduceerde UC-ratten een afname van Firmicutes en Lactobacillus vertonen, en een toename van Bacteroidetes en Proteobacteria — in overeenstemming met klinische UC-profielen11. BJQF en JPF keerden deze abnormaliteiten het meest effectief om, terwijl BSF en QCF matige effecten vertoonden. Gezien het feit dat Firmicutes-taxa zoals Lactobacillus en Clostridium goed gedocumenteerd zijn als dragers van de kernenzymatische machinerie voor de biosynthese van secundaire BA12, suggereert dit een potentiële associatieve link: BJQF, en met name de Jianpi-module ervan, herstelt Firmicutes met BA-biosynthetische capaciteit, wat de biotransformatie van secundaire BA kan versterken en de metabole stoornis kan corrigeren. Op genusniveau keerden BJQF en JPF ook de UC-geïnduceerde veranderingen in Bacteroides, Ruminococcus_2, Enterorhabdus en Corynebacterium_1 om, waardoor dysbiose en BA-synthese-gerelateerde functies verder werden hersteld.
Het herstel van microbiële dysbiose kan bijdragen aan de normalisatie van de BA-pool, een cruciaal metabolisch mechanisme van anti-colitiseffecten. Het BA-metabolisme is sterk afhankelijk van microbiële activiteit, en secundaire BA's zijn essentieel voor de immuunhomeostase en de integriteit van de barrière13. De LC-MS/MS-gegevens tonen aan dat UC-ratten een vermindering van beschermende secundaire BA's (23-DCA, 3-oxo-DCA, DLCA) en een ophoping van gesulfateerde BA's (TLCA-3S, LCA-3S) vertonen — in overeenstemming met eerdere rapporten over UC-geassocieerde BA-dysregulatie14. Gesulfateerde BA's hebben een lage intestinale absorptiecapaciteit en kunnen de enterohepatische kringloop niet betreden15; hun ophoping weerspiegelt een verstoord BA-metabolisme en is gekoppeld aan de activatie van pro-inflammatoire pathways16. Alle formules keerden deze stoornis om, waarbij BJQF en JPF de sterkste effecten vertoonden.
Correlatieanalyse bevestigt 23-DCA als de belangrijkste BA-knooppunt geassocieerd met veranderingen in de kernphyla: positief gecorreleerd met Firmicutes en negatief met Proteobacteria. Als een secundaire BA met ontstekingsremmende en barrièrebeschermende effecten17, is de upregulatie van 23-DCA door BJQF/JPF potentieel toe te schrijven aan de verrijking van Firmicutes en versterkte biosynthese, en correleert dit met verminderde cytokines en een verbeterde histologie. Op basis van deze correlationele bevindingen stellen de auteurs een hypothetisch mechanistisch model voor: BJQF herstelt de abundantie van Firmicutes > versterkt de microbiële biosynthese van secundaire BA > reguleert beschermende 23-DCA op > remt intestinale ontsteking. Dit model moet nog worden gevalideerd door functionele experimenten.
Deze studie slaat een brug tussen de TCM-theorie en de moderne moleculaire biologie door BJQF-functionele modules te koppelen aan specifieke microbiële en metabole veranderingen. Het concept Jianpi vormt de centrale schakel. In overeenstemming met de TCM-theorie van "wederzijdse versterking tussen milt en nieren"18, vertoonde BSF een matige verrijking van Firmicutes en een upregulatie van 23-DCA. QCF zorgde hoofdzakelijk voor een verrijking van Verrucomicrobia (Akkermansia) en reguleerde het xenobiotisch metabolisme, wat het effect van "het klaren van vocht-hitte" weerspiegelt. De volledige formule oefent synergistische effecten uit die superieur zijn aan die van elke individuele module, wat de rationaliteit van het TCM-ontwerp van samengestelde middelen op basis van syndroomdifferentiatie bevestigt.
Correlatieanalyse onthult verder verschillende interactienetwerken tussen bacteriën en galzuren (BA) die door elke formule worden gevormd. Deze verschillen weerspiegelen modulespecifieke regulatoire kenmerken en bieden een basis voor geïndividualiseerde klinische toepassing: JPF voor UC met een dominantie van miltdeficiëntie met Firmicutes-gecentreerde dysbiose, QCF voor UC met een dominantie van vochtigheid-hitte met schade aan de mucosale barrière, en volledige BJQF voor het klassieke gecombineerde syndroom. In overeenstemming met de bevindingen ondersteunen recente studies ook de darmmicrobiota-galzuuras als een kerntherapeutisch doelwit voor UC en TCM-interventie19,20,21,22. Secundaire BA-deficiëntie gedreven door microbiële dysbiose is een kernkenmerk van actieve UC, en het herstellen van de BA-homeostase kan inflammatie en mucosale schade effectief verlichten23.
Deze studie kent verschillende beperkingen. Ten eerste zijn alle associaties tussen microbiële remodellering en BA-normalisatie gebaseerd op correlationele multi-omics-analyse; causale relaties zijn niet gevalideerd door functionele experimenten, zoals fecale microbiota-transplantatie. Ten tweede is de steekproefomvang relatief bescheiden, wat de statistische kracht en generaliseerbaarheid kan beperken. Ten derde werden alleen fecale BA's gekwantificeerd; serum- en mucosaal BA-profielen, die de enterohepatische circulatie reflecteren, werden niet gemeten. Ten vierde zijn de specifieke actieve fytochemicaliën die verantwoordelijk zijn voor de regulatie van het microbiota en BA nog niet geïdentificeerd. Toekomstig werk zal causale relaties valideren via FMT en experimenten met kiemvrije dieren, de belangrijkste actieve componenten van BJQF identificeren en klinische pilotstudies uitvoeren om de translationele waarde te verifiëren.
Openbaarmakingen
De auteurs hebben niets te melden.
BIJDRAGE VAN DE AUTEURS:
Hongyu Chen droeg bij aan de conceptualisering, methodologie, validatie, formele analyse, het onderzoek, de visualisatie en het schrijven van het oorspronkelijke concept van het manuscript. Song Zhao droeg bij aan de methodologie, projectadministratie, het onderzoek, de visualisatie, het verwerven van financiering en het schrijven van het oorspronkelijke concept. Luzhou Xu droeg bij aan de conceptualisering, het verstrekken van middelen, het beoordelen en redigeren van het manuscript, de projectadministratie en het algemene toezicht op de studie.
Dankbetuigingen
Dit werk werd ondersteund door de National Natural Science Foundation of China (81774243).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0,2 mL PCR-buisjes | Axygen | PCR-02-C | Voor 16S rRNA-gen PCR-amplificatiereacties |
| 1,5 mL steriele centrifugebuisjes | Axygen | MCT-150-C | Steriele containers voor monstername, bewaring en centrifugatie |
| 10% neutraal gebufferde formaline | Solarbio Science & Technology | 1008128 | Voor fixatie van colonweefselmonsters |
| 6500 QTRAP MS/MS-systeem | Sciex | 5009065 | Voor MRM-gebaseerde kwantitatieve profilering van fecale galzuren |
| -80 ºC ultra-lage temperatuurvriezer | Thermo Fisher Scientific | 702-UR | Voor cryopreservatie van fecale monsters en biologische preparaten |
| Agarose | Sigma-Aldrich | A9539 | Voor detectie van DNA-integriteit via gelelektroforese |
| Alpiniae Oxyphyllae Fructus | Nanjing TCM Co., Ltd. | Batch 20230321 | Ruw kruidenmateriaal, 15 g per dosis, gebruikt in BJQF en BSF |
| Astragali Radix | Nanjing TCM Co., Ltd. | Batch 20230312 | Ruw kruidenmateriaal, 15 g per dosis, gebruikt in BJQF en JPF |
| Aucklandiae Radix | Nanjing TCM Co., Ltd. | Batch 20230217 | Ruw kruidenmateriaal, 6 g per dosis, gebruikt in BJQF en QCF |
| Bile Acid Standard Mix | Sigma-Aldrich | B4893 | Voor kwalitatieve en kwantitatieve kalibratie van fecale galzuren |
| Coptidis Rhizoma | Nanjing TCM Co., Ltd. | Batch 20230118 | Ruw kruidenmateriaal, 4 g per dosis, gebruikt in BJQF en QCF |
| Dextraansulfaatnatrium (DSS, 36–50 kDa) | MP Biomedicals | 160110 | Voor UC-inductie bij ratten, bereid als 3,5% (wt/vol) drinkoplossing gedurende 10 opeenvolgende dagen |
| Glycyrrhizae Radix | Nanjing TCM Co., Ltd. | Batch 20230411 | Ruw kruidenmateriaal, 5 g per dosis, gebruikt in BJQF en JPF |
| GraphPad Prism | GraphPad Software | v7.00 | Voor statistische analyse, significantietoetsing en het maken van wetenschappelijke grafieken |
| Hematoxyline-Eosine (H&E) kleuringskit | Beyotime Biotechnology | C0105S | Voor kleuring van colonweefselcoupes, histopathologisch onderzoek en ontstekingsscoring |
| Hogesnelheids gekoelde centrifuge | Eppendorf | 5810R | Voor centrifugatie van monsters bij nucleïnezuurextractie en metabolomics-voorbereiding |
| HPLC-waardige methanol | Merck KGaA | 1.06007.4008 | Voor LC-MS/MS monsterbereiding en bereiding van de mobiele fase |
| Illumina MiSeq sequencingplatform | Illumina Inc. | SY-410-1003 | Voor high-throughput sequencing van het 16S rRNA-gen en profilering van de darmmicrobiota |
| KEGG-database | Kanehisa Laboratories | Release 107.0 | Voor annotatie van microbiële functionele paden |
| Mannelijke SPF-grade SD-ratten | Shanghai Xipu-Bikai Experimental Animal Co., Ltd. | / | 44 ratten met een gewicht van 200 ± 20 g, voor constructie van het UC-model en vervolgexperimenten |
| Multiskan™ GO microplaatlezer | Thermo Fisher Scientific Oy | 51119080 | Voor ELISA-absorptiemetingen en cytokinenkwantificatie |
| NanoDrop 2000 spectrophotometer | Thermo Fisher Scientific | ND-2000 | Voor kwantificatie en zuiverheidsbeoordeling van fecaal bacterieel genomisch DNA |
| Paraffine-inbedcassettes | Leica Biosystems | 3801520 | Voor dehydratatie en paraffine-inbedding van colonweefsel |
| PowerFecal® DNA-isolatiekit | MoBio (Qiagen) | 12830-50 | Voor extractie en zuivering van fecaal bacterieel genomisch DNA |
| Psoraleae Fructus | Nanjing TCM Co., Ltd. | Batch 20230129 | Ruw kruidenmateriaal, 15 g per dosis, gebruikt in BJQF en BSF |
| R statistische omgeving | R Foundation for Statistical Computing | v4.2.0 | Voor bio-informatica-analyse en statistische berekeningen |
| Rat IL-10 ELISA-kit | Lun Chang Shuo Biotech | YD-30194 | Voor kwantitatieve detectie van de serumconcentratie van IL-10 |
| Rat IL-1β ELISA-kit | Lun Chang Shuo Biotech | YD-30206 | Voor kwantitatieve detectie van de serumconcentratie van IL-1β |
| Rat TNF-α ELISA-kit | Lun Chang Shuo Biotech | YD-31063 | Voor kwantitatieve detectie van de serumconcentratie van TNF-α |
| Sanguisorbae Radix | Nanjing TCM Co., Ltd. | Batch 20230309 | Ruw kruidenmateriaal, 10 g per dosis, gebruikt in BJQF en QCF |
| Scutellariae Radix | Nanjing TCM Co., Ltd. | Batch 20230407 | Ruw kruidenmateriaal, 10 g per dosis, gebruikt in BJQF en QCF |
| Shim-pack UFLC UPLC-systeem | Shimadzu Corporation | CBM-20A | Voor chromatografische scheiding van fecale galzuursamples |
| Stir-fried Atractylodis Macrocephalae Rhizoma | Nanjing TCM Co., Ltd. | Batch 20230225 | Ruw kruidenmateriaal, 10 g per dosis, gebruikt in BJQF en JPF |
Referenties
- Gilbert JA, et al. Current understanding of the human microbiome. Nat Med. 2018;24(4):392-400.
- Fiorucci S, et al. Bile acid signaling in inflammatory bowel diseases. Dig Dis Sci. 2021;66(3):674-693.
- Sinha SR, et al. Dysbiosis-induced secondary bile acid deficiency promotes intestinal inflammation. Cell Host Microbe. 2020;27(4):659-670.e5.
- Zhan K, et al. Gut microbiota-bile acid crosstalk in diarrhea-irritable bowel syndrome. Biomed Res Int. 2020;2020:3828249.
- Zhang C, Jiang M, Lu A. Considerations of traditional Chinese medicine as adjunct therapy in the management of ulcerative colitis. Clin Rev Allergy Immunol. 2013;44(3):274-283.
- Zhang S, et al. Consensus on Chinese medical diagnosis and treatment of ulcerative colitis (2009). Chin J Integr Tradit West Med. 2010;30(5):527-532.
- Chen YL, et al. Systems pharmacology approach reveals protective mechanisms of Jian-Pi Qing-Chang decoction on ulcerative colitis. World J Gastroenterol. 2019;25(21):2603-2622.
- Hu J, et al. Qingchang Huashi Formula attenuates DSS-induced colitis in mice by restoring gut microbiota-metabolism homeostasis and goblet cell function. J Ethnopharmacol. 2021;266:113394.
- Cooper HS, et al. Clinicopathologic study of dextran sulfate sodium experimental murine colitis. Lab Invest. 1993;69(2):238-249.
- Zuo T, Ng SC. The gut microbiota in the pathogenesis and therapeutics of inflammatory bowel disease. Front Microbiol. 2018;9:2247.
- Kobayashi T, et al. Ulcerative colitis. Nat Rev Dis Primers. 2020;6(1):74.
- Wahlström A, Sayin SI, Marschall HU, Bäckhed F. Intestinal crosstalk between bile acids and microbiota and its impact on host metabolism. Cell Metab. 2016;24(1):41-50.
- Joyce SA, Gahan CGM. Bile acid-microbiota crosstalk in inflammatory bowel disease. Nat Rev Gastroenterol Hepatol. 2020;17(11):694-707.
- Duboc H, et al. Connecting dysbiosis, bile-acid dysmetabolism and gut inflammation in inflammatory bowel diseases. Gut. 2013;62(4):531-539.
- Alnouti Y. Bile acid sulfation: A pathway of bile acid elimination and detoxification. Toxicol Sci. 2009;108(2):225-246.
- Ungaro R, et al. Ulcerative colitis. Lancet. 2017;389(10080):1756-1770.
- Tang Y, Li Y, Zhang L, et al. 23-Deoxycholic acid ameliorates colitis by regulating gut microbiota and activating FXR signaling. J Ethnopharmacol. 2022;298:115463.
- Lu YH, Cong LL, Zhang Y. TCM syndrome classification and its correlation with gut microbiota in ulcerative colitis. Chin J Integr Tradit West Med. 2020;40(7):867-871.
- Zhang Y, Li X, Wang H. Traditional Chinese medicine for inflammatory bowel disease: From empirical therapy to mechanism-based treatment. J Ethnopharmacol. 2022;296:115347.
- Li J, Wang Y, Zhang L, et al. Targeting the gut microbiota-bile acid axis: a novel strategy for TCM compound prescriptions in treating chronic inflammatory diseases. Pharmacol Res. 2023;192:106589.
- Abdo W, et al. Gut Microbiota and Bile Acid Metabolism in Inflammatory Bowel Disease: Pathophysiological Links and Therapeutic Implications. Arch Med Res. 2023;54(8):789-801.
- Liu M, et al. Traditional Chinese Medicine Targeting Gut Microbiota-Bile Acid Axis for Ulcerative Colitis: A Systematic Review. Arch Med Res. 2022;53(6):542-553.
- Chen L, et al. Secondary Bile Acids as Key Mediators of Intestinal Mucosal Barrier Protection in Inflammatory Bowel Disease. Arch Med Res. 2023;54(2):189-200.