Deze studie evalueert de behandeling met Qi-fu-yin (QFY) bij 5xFAD-muizen. De bevindingen tonen aan dat toediening van QFY geassocieerd is met een verbeterde leer- en geheugenprestatie, verminderde cerebrale Aβ-depositie en cellulaire senescentie, en verminderde structurele synaptische schade in de cerebrale cortex.
Onderzoeksartikel
Effecten van Qi-fu-yin op het verbeteren van cognitieve stoornissen en het verminderen van cellulaire senescentie in de hersenen van 5xFAD-muizen
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Hoewel het mechanisme van Qi-fu-yin (QFY), een traditioneel Chinees geneesmiddel, nog niet volledig is begrepen, heeft het therapeutisch potentieel getoond bij de ziekte van Alzheimer (AD). Deze studie had tot doel het verband te onderzoeken tussen QFY-behandeling en cognitieve stoornissen bij 5xFAD-muizen. We gebruikten gripkracht, ganganalyse, nestbouwgedrag, een shuttle-box, de Morris water maze-test en ELISA om de spiegels van Amyloïd-β proteïne 1-42 (Aβ1-42), Aβ1-40, Growth-associated protein 43 (GAP-43), Synaptophysin (SYN) en Postsynaptic density protein 95 (PSD-95) in de hersenen van 5xFAD-muizen te evalueren. Luminex cytokine-analyse werd gebruikt om de spiegels van het Senescence-associated secretory phenotype (SASP) in de cortex te kwantificeren. De hoeveelheid Senescence-associated β-galactosidase (SA-β-Gal), Aβ-depositie en dendritische stekels in de hersenen van de dieren werd respectievelijk gemeten via SA-β-Gal-kleuring, immunohistochemie en Golgi-Cox-kleuring. Volgens immunofluorescentietests verminderde QFY-behandeling de corticale Aβ-plaquebelasting drastisch en verlaagde het de p21-expressie in 5xFAD-muizen. Bij 5xFAD-muizen verbeterde QFY-therapie de leer- en geheugenprestaties merkbaar, verzachtte het veroudering en verhoogde het de hoeveelheden GAP-43-, PSD-95- en SYN-proteïnen in de cortex van de muizen. Na QFY-behandeling was er een significante afname van Aβ-plaque en SA-β-Gal-activiteit in de hersenen, evenals van Aβ1-42- en Aβ1-42/Aβ1-40-spiegels in de hippocampus. De spiegels van IL-1α, IL-1β, IL-6, IL-17A en IFN-γ waren aanzienlijk verlaagd in de cortex van de 5xFAD-muizen. PCA- en Pearson-correlatieanalyses toonden een sterke negatieve associatie aan tussen SASP-cytokinen en synaptische proteïneniveaus. Deze bevindingen suggereren een verband tussen QFY-behandeling en verbeteringen in ouderdomsgerelateerde cognitieve achteruitgang en cellulaire senescentie-fenotypes in 5xFAD-muizen, samen met verminderde synaptische structurele schade. Deze resultaten ondersteunen verdere studie naar QFY als een potentiële therapeutische kandidaat voor de ziekte van Alzheimer.
Inleiding
Alzheimer's disease (AD)1 is the most prevalent form of dementia, characterized by amyloid-β protein (Aβ), hyperphosphorylated tau proteins (P-Tau), synaptic loss, and chronic inflammation. Currently available medications for AD have a number of side effects and are unable to stop the disease's progression2,3,4,5.
Senescence, which manifests as organism-wide disruptions across cellular and interstitial microenvironments rather than localized organ-specific alterations, is a key risk factor in AD pathogenesis. This systemic dysregulation distinguishes AD progression from single tissue-pathology models by fundamentally changing homeostatic mechanisms across biological systems6,7. Although cellular senescence initially serves as a homeostatic regulatory mechanism, the accumulation of senescent cells eventually causes progressive tissue degradation and persistent inflammatory cascades, fundamentally disrupting physiological homeostasis8. The ensuing inflammation may harm synapses and impair cognitive function9,10.
Cellular senescence is a complex cellular stress response characterized by telomere shortening, permanent cell-cycle arrest, and altered secretory activity11. Additional hallmarks include enlarged, flattened cell morphology, positive senescence-associated β-galactosidase (SA-β-Gal) staining, lipofuscin accumulation, and secretion of SASP factors12. Memory formation is affected by the notable decline in the levels of proteins associated with synaptic plasticity of axons and dendrites, which occurs with cellular senescence13,14. Because synaptic plasticity is essential for learning and memory, disruptions in synaptic proteins contribute to cognitive impairment. These proteins include GAP-43, SYN, and PSD-95. Undoubtedly, synaptic function is affected by reductions in dendritic numbers and functional abnormalities in the brains of the elderly15.
QFY is a traditional Chinese medicine formula derived from Jing Yue Quan Shu. It is composed of Panax ginseng C.A.Mey (Araliaceae), Polygala tenuifolia Willd (Polygalaceae), Rehmannia glutinosa (Gaertn.) Libosch. ex Fisch. & C. A. Mey (Orobanchaceae), Angelica sinensis (Oliv.) Diels (Apiaceae), Glycyrrhiza uralensis Fisch. ex DC. (Fabaceae), Atractylodes macrocephala Koidz (Asteraceae), Ziziphus jujuba Mill. var. spinosa (Bunge) Hu ex H.F. Chou (Rhamnaceae). Research has demonstrated that QFY significantly ameliorates cognitive dysfunction in rats with diabetes-induced brain injury16. Our previous study found that QFY could improve cognitive learning and memory functions impairment in 5xFAD and APP/PS1 mice. In addition, QFY demonstrated high safety in non-clinical studies, and no obvious acute, subacute, or long-term toxic reactions were observed17,18,19. Analysis of the clinical therapeutic effect of QFY showed that AD patients experienced a significant increase in their capacity for activities of daily living and MMSE scores after QFY treatment20. Following three consecutive days of QFY administration in male Sprague-Dawley rats, ten prototype QFY-derived components, including butylidenephthalide, butylphthalide, 20(S)-ginsenoside Rh1, 20(R)-ginsenoside Rh1, and zingibroside R1, were detected in cerebrospinal fluid21,22. However, the therapeutic mechanism of QFY in AD is still unclear. In this study, we investigated the association between QFY treatment, cellular senescence, and AD-related pathological changes in 5xFAD mice.
Although previous studies have demonstrated the neuroprotective effects of QFY in AD models, the specific involvement of cellular senescence in mediating these effects remains unexplored. Moreover, whether QFY confers cognitive benefits through senescence‑associated synaptic preservation, rather than solely through amyloid‑β reduction, has not been addressed. The present study was therefore designed to investigate whether QFY treatment attenuates cellular senescence and whether this attenuation is associated with improved synaptic plasticity in 5xFAD mice.
Protocol
Alle dierproeven zijn goedgekeurd door de Ethische Commissie voor Experimenteel Dierenwelzijn van de Shandong University of Traditional Chinese Medicine (SDUTCM20221101001).
Medicijnen
QFY-granulaat droge crèmpoeder werd geproduceerd en getest door het Lunan Pharmaceutical Houpu Research and Development Center. Donepezil en Memantine werden aangeschaft bij Shanghai Yuanye Technology. In deze studie werden mannelijke 5xFAD-muizen met een initieel lichaamsgewicht tussen 19–27 g gebruikt. De QFY-dosering was afgeleid van de klinische menselijke dosis van 43 g/d, wat na correctie voor het QFY-granulaat droge crèmpoeder overeenkomt met 16,297 g/d. De gemiddelde dosis voor het huidige experiment werd berekend op basis van de klinische menselijke dosis (16,297 g/70 kg x 9,1 = 2,11861 g/kg/d). De hoge dosis werd vastgesteld op twee keer de gemiddelde dosis (4,24 g/kg/d) en de lage dosis op de helft van de gemiddelde dosis (1,06 g/kg/d). Alle drugoplossingen werden toegediend in een volume van 0,1 mL per 10 g lichaamsgewicht.
Voor de positieve controle werd een gecombineerde toediening van donepezil en memantinehydrochloride gebruikt. De doseringen werden bepaald op basis van hun huidige klinische toepassingdosissen (respectievelijk 10 mg/d en 20 mg/d) en eerdere gegevens van onze onderzoeksgroep, wat resulteerde in een schema van 1,0 mg/kg/d donepezil plus 2,8 mg/kg/d memantine, wat een totale gecombineerde dosis van 3,8 mg/kg/d opleverde. De uiteindelijke concentratie van het donepezil-memantine mengsel werd bereid als 0,38 mg/mL, berekend als 3,8 mg/kg gedeeld door het toedieningsvolume van 0,1 mL per 10 g lichaamsgewicht.
QFY-oplossingen bij lage, middelmatige en hoge doses werden als volgt bereid: 5,3 g, 10,6 g en 21,2 g QFY-droogpoeder werden elk in afzonderlijke bekerglazen van 100 mL geplaatst, gemengd met 30 mL gezuiverd water onder grondig roeren, overgebracht naar maatcilinders en aangevuld met gezuiverd water tot een eindvolume van 50 mL, wat resulteerde in uiteindelijke massaconcentraties van respectievelijk 0,106 g/mL, 0,212 g/mL en 0,424 g/mL. Voor de positieve controle werden 5 mg donepezil en 14 mg memantine opgelost in gezuiverd water en aangevuld tot een eindvolume van 50 mL. De dieren in elke groep kregen eenmaal daags de overeenkomstige drugoplossing toegediend via orale gavage.
Dieren
5xFAD transgene muizen [B6. Cg-Tg (APPSwFlLon, PSEN1* M146L* L286V)6799Vas/Mmjax] werden in het laboratorium gefokt. De dieren werden allemaal gehouden in een SPF-omgeving aan de Shandong University of Traditional Chinese Medicine, bij een temperatuur van 22–24 oC, een luchtvochtigheid van 50–60% en een licht-donkercyclus van 12 u. Voedsel en water waren te allen tijde beschikbaar voor de dieren.
Op de leeftijd van 2,5 maand werden mannelijke 5xFAD-muizen willekeurig verdeeld over vijf groepen: onbehandelde 5xFAD, donepezil plus memantine, laaggedoseerd QFY, mediumgedoseerd QFY en hooggedoseerd QFY. Leeftijdsmatchende mannelijke wild-type (WT) nestgenoten dienden als de WT-controlegroep. De behandelingen werden eenmaal daags toegediend gedurende 220 dagen. (Figuur 1).
Gedragstesten
Grijpkrachttest
De skeletspierkracht van de voorpoten van de muizen werd gemeten met een grijpkrachtmeter23. Tijdens het experiment werd het meetapparaat horizontaal geplaatst, zodat de muis parallel aan het tafeloppervlak bleef. Nadat het apparaat was ingeschakeld, werd de muis voorzichtig op de grijpplaat geplaatst. Zodra de muis de plaat stevig had vastgegrepen, werd de staart met gelijke kracht naar achteren getrokken totdat de muis de grip losliet. De maximale grijpkracht werd genoteerd. Deze meting werd drie keer herhaald, en het gemiddelde van deze waarden werd gebruikt om de grijpkracht van de muis te bepalen.
Gangtest
De regelmaat van de gang van de muizen werd gemeten met CatWalk XT. Het experiment werd onderverdeeld in een trainingsperiode en een testperiode24. Eén dag eerder werden de experimentele muizen overgebracht naar de experimentele ruimte zodat zij konden wennen aan de nieuwe omgeving. Tijdens de trainingsperiode werden de muizen op het startpunt geplaatst en liepen zij langs het kanaal naar het eindpunt. Elke muis werd drie keer per dag getraind. Na 3 dagen training (totdat elke muis snel door het kanaal kon lopen), werden de muizen teruggeplaatst in de kooi. De testperiode was gelijk aan de trainingsperiode, waarbij de computersoftware elke bewegingstraject automatisch analyseerde. Groene stippen werden weergegeven als het traject gekwalificeerd was, oranje stippen waren ongekwalificeerd; voor elke muis waren ten minste drie groene stippen gekwalificeerd, welke werden geanalyseerd met CatWalkXT 10.0 software.
Shuttle box-test
De shuttle box-test werd gebruikt om het vermogen tot conditionele actieve vermijding bij muizen te beoordelen25. De opstelling bestond uit een shuttle box (18 cm x 18 cm) geplaatst in een geluidsisolerende kamer. Het experiment bestond uit een leerperiode van 4 dagen, gevolgd door een testperiode van 1 dag. Op elke leerdag kregen de muizen een adaptatieperiode van 120 s in de shuttle box voordat de training begon. Elke trial begon met een geconditioneerde stimulus van 6 s (70-dB, 1000-Hz toon gecombineerd met licht van 500 lux), gevolgd door een voetshock van 3 s en 0,3 mA afgegeven via de roosterbodem, en werd afgesloten met een inter-trial interval van 12 s. Als de muis tijdens de geconditioneerde stimulus naar het tegenovergestelde compartiment liep, werd de shock weggelaten en werd de respons geregistreerd als actieve vermijding. Als de muis niet overstak tijdens de geconditioneerde stimulus, maar wel tijdens de voetshock, werd dit geregistreerd als een passieve vermijdingsrespons. Als de muis gedurende de gehele trial niet overstak, werd dit geregistreerd als een ontsnappingsfout. De training werd 4 opeenvolgende dagen herhaald met 30 trials per dag. Tijdens de testperiode (dag 5) werd de voetshock weggelaten, terwijl alle andere parameters gelijk bleven aan die in de leerperiode. Het aantal actieve vermijdingsresponsen werd genoteerd als de primaire maat voor leren en geheugen.
Morris water maze
De Morris water maze-test werd gebruikt om het ruimtelijk leervermogen en het geheugen van de proefdieren te beoordelen26. Het experiment werd uitgevoerd in een tank met een diameter van 120 cm en een diepte van 50 cm. De tank was gevuld met troebel wit water en de temperatuur werd gehandhaafd op 21 °C. Een platform met een diameter van 10 cm werd in een van de kwadranten geplaatst op 1 cm onder het wateroppervlak. Rondom het bassin werden visuele aanwijzingen geplaatst als ruimtelijke referentiepunten voor de muizen. Het leerproces vond plaats over vier opeenvolgende dagen, waarbij de sessies van elke dag begonnen in een van de drie kwadranten. De startposities varieerden pseudo-random over de vier windstreken. Bij elke poging eindigde de procedure zodra het dier het platform succesvol had bereikt. Er werd een maximale duur van 60 s per poging vastgesteld; als het dier het platform binnen deze tijd niet kon vinden, werd het voorzichtig naar het platform geleid. Nadat het platform was bereikt, kreeg het dier een korte rustperiode van 10 s voordat het werd teruggeplaatst in de thuiskooi. Na afloop van de leerperiode begon de testperiode 24 u later. Op dag 5 werden de muizen geplaatst in het kwadrant tegenover het platform. De ontsnappingstijd van de testperiode, de bewegingstijd in het doelkwadrant en het aantal oversteken van de oorspronkelijke plek van het onderwaterplatform werden geregistreerd.
Kolonienestingsproef
De dagelijkse activiteiten van de proefdieren werden beoordeeld met de colony nesting test27. Het experiment duurde 24 u, met drie dieren per groep. Na de toediening van het geneesmiddel op dezelfde dag werden nieuwe kooien ingericht en bekleed met 6 g zacht papier voor het nesten, waarna er op 6 u, 12 u en 24 u foto's werden gemaakt. Aan het einde van het experiment kreeg het papier 1 punt als het door de kooi was verspreid en er geen stukken waren afgebeten. Er werden 2 punten toegekend als de papierstukjes aan de zijkant van de kooi waren geclusterd, maar losjes, zonder gevormde nesten en zonder duidelijke scheuren of vouwen; 3 punten als de papierstukjes waren verzameld en gevouwen tot een gevormd maar relatief plat nest zonder duidelijke scheuren; een diep nest met uitgebreid versnipperd papier kreeg een score van 4. Aan het einde van het experiment werd het resterende niet gescheurde weefsel (gedefinieerd als papierfragmenten met een gewicht >0,1 g die niet waren versnipperd of in het nest waren opgenomen) zorgvuldig verzameld, aan de lucht gedroogd en gewogen met een elektronische balans (precisie: 0,01 g).
Bemonstering en monstername
We hebben alleen monsters verzameld van de WT-, 5xFAD- en QFY (2,12 g/kg/d)-groepen. Na CO2 -asfyxie werden de koppen afgezet, werd de rechterhemisfeer snel geopend om de hippocampus en cortex te scheiden, gespoeld met fosfaatgebufferde zoutoplossing (PBS) en geplaatst in 1,5 mL cryovials in vloeibare stikstof. Deze werden bewaard bij -80 oC voor biochemische testen. De linkerhemisfeer werd gefixeerd door immersie in 4% paraformaldehyde gedurende 24 uur, gedehydrateerd door immersie in absolute ethanol, ingebed in paraffine, gesneden in secties van 5 µm en gedeparaffineerd voor immunohistochemische detectie.
Enzyme-linked immunosorbent assay (ELISA)
ELISA's werden uitgevoerd om de hoeveelheden van doeleiwitten in hersenweefsels te kwantificeren. De gehaltes aan Aβ1–40 en Aβ1–42 in hippocampale homogenaten werden gemeten met commerciële kits, terwijl de corticale niveaus van GAP-43, PSD-95 en SYN werden bepaald met kits van Jiangsu Enzyme Immunoassay Industry. Alle procedures werden strikt uitgevoerd volgens de protocollen van de fabrikanten. Standaardseries werden bereid door seriële verdunning volgens de instructies van de kit. De lay-out van de microplaat omvatte blanco wells, standaard-wells, 5xFAD-monster-wells, QFY-behandelde (2,12 g/kg/d) monster-wells en wild-type wells. Voor het laden werden alle monsters tweevoudig verdund met het meegeleverde verdunningsmiddel. Reagentia werden toegevoegd terwijl de pipetpunt loodrecht op de bodem van de well werd gehouden, waarna voorzichtig werd geschud om een grondige menging te garanderen.
Na het afsegelen van de plaat werd de eerste incubatie uitgevoerd bij 37 °C gedurende 30 min. Tijdens deze periode werd de wasbuffer bereid door de geconcentreerde voorraad te verdunnen met ultrapuur water in een verhouding van 1:29 (1 mL concentraat op 29 mL water). Na de incubatie werd de sealfilm verwijderd, de vloeistof afgevoerd en de plaat drooggedept. Elke put werd vervolgens gevuld met 200 µL wasbuffer, 30 s laat staan en daarna geleegd; deze cyclus werd 5 keer herhaald. Enzymgelabelde reagens (50 µL) werd vervolgens toegevoegd aan alle putten behalve de blanks, waarna de plaat opnieuw werd afgesegeld en geïncubeerd bij 37 °C gedurende 30 min, gevolgd door een identieke wasstap van vijf cycli.
Voor de kleurontwikkeling werd 50 µL chromogeenoplossing A aan elke put toegevoegd, gevolgd door 50 µL chromogeenoplossing B, waarbij na elke toevoeging voorzichtig werd gemengd. De plaat werd 10 min in het donker geïncubeerd bij 37 °C. De enzymatische reactie werd beëindigd door 50 µL stopoplossing per put toe te voegen, waardoor de blauwe kleur prompt omsloeg naar geel. De absorbentie (optische dichtheid) werd gemeten bij 450 nm met een microplaatlezer, waarbij blanco putten als referentie dienden; alle metingen werden uitgevoerd binnen 15 min na het stopzetten van de reactie.
Luminex
Corticale niveaus van SASP-factoren werden gemeten met de Bio‑Plex Pro Mouse Cytokine 23‑plex Assay kit, waarbij alle procedures werden uitgevoerd volgens de instructies van de fabrikant. Reagentia werden uit de opslag bij 4 °C gehaald en 30 min voor gebruik gebracht naar kamertemperatuur. Standaardvoorraden werden serieel verdund om een standaardcurve van zeven punten te genereren, plus één blanco well, conform het kitprotocol. Magnetische beads werden vooraf gemengd en verdund tot de aanbevolen werkconcentratie; detectie-antilichamen werden klaargemaakt als werkoplossingen; en het wasbufferconcentraat werd verdund tot 1x met gedeïoniseerd water. PE‑streptavidine-conjugaat werd eveneens verdund tot 1x met behulp van de meegeleverde verdunningsbuffer.
Voor de assay werden 50 µL kraal-suspensie, standaarden, kwaliteitscontroles en verdunde weefselmonsters (5,6 µg/µL) opeenvolgend toegevoegd aan de aangewezen wells volgens het plaatontwerp. De plaat werd vervolgens afgesloten en overnight geïncubeerd bij 4 °C onder orbitale schudding op 800 rpm. Na de incubatie werden de kralen drie keer gewassen met 200 µL wasbuffer per well. Vervolgens werd 50 µL van het voorbereide detectie-antilichaam aan elke well toegevoegd, waarna de plaat 1 u bij kamertemperatuur werd geïncubeerd met schudden op 800 rpm. Na nog drie wascycli werd 50 µL PE‑streptavidine-werkoplossing toegevoegd en werd de plaat nogmaals 30 min bij kamertemperatuur geïncubeerd onder dezelfde schudcondities. Er werd een laatste wasstap uitgevoerd (drie keer met 200 µL wasbuffer), waarna 150 µL wasbuffer aan elke well werd toegevoegd en de plaat 2 min bij kamertemperatuur op 800 rpm werd geschud voordat deze werd uitgelezen op het Bio‑Plex-instrument.
SA-β-Gal kleuring en immunohistochemie
SA-β-Gal-kleuring werd uitgevoerd volgens de Senescence β-Galactosidase Staining Kit. Na SA-β-Gal-kleuring werden de coupes onderworpen aan antigeenherstel door verhitting in citraatbuffer (pH 6,0). Endogene peroxidaseactiviteit werd geblokkeerd door de coupes 10 min bij kamertemperatuur te incuberen in een peroxidase-blokkeringsoplossing. De coupes werden vervolgens overnacht bij 4 °C geïncubeerd met een rabbit monoclonal anti‑Aβ₁-₄₂ antilichaam (1:400). Na het wassen werden de coupes 20 min bij kamertemperatuur geïncubeerd met een anti‑rabbit/mouse IgG secundair antilichaam. Na verder wassen werd de immunoreactiviteit gedurende 2 min gevisualiseerd met DAB. Ten slotte werden de coupes gedehydrateerd, geklaard en gemonteerd met neutrale hars voor microscopisch onderzoek.
Immunofluorescentie
Voor immunofluorescentiekleuring werden paraffinecoupes gedeparaffineerd in xyleen (3 x 15 min) en rehydrateerd via een gradiënt van ethanol (100%, 95% en 75%; telkens 2 x 5 min). Antigeenherstel werd uitgevoerd door de coupes 30 min gedurende 95 °C onder te dompelen in 1x natriumcitraatbuffer, waarna ze geleidelijk afkoelden tot kamertemperatuur. Na drie spoelingen met fosfaatgebufferde zoutoplossing met Tween 20 (PBST) (telkens 5 min) werden de coupes gepermeabiliseerd en geblokkeerd met 10% normaal geitenserum mengandung 0,3% Triton X‑100 gedurende 90 min bij kamertemperatuur. De coupes werden vervolgens 2 u gedurende 37 °C geïncubeerd met primaire antilichamen tegen p21/CIP1/CDKN1A (1:200) en Aβ₁‑₄₂ (1:400). Na vier wasbeurten met PBST (telkens 5 min) werden de coupes 2 u gedurende 37 °C in het donker geïncubeerd met soortspecifieke Alexa Fluor-geconjugeerde secundaire antilichamen (1:500). Na verdere wasbeurten (4 x 5 min in PBST) werden de coupes gemonteerd met een antifade-monteermedium met DAPI en gefotografeerd met een fluorescentiemicroscoop.
Golgi-Cox kleuring
Golgi‑Cox-kleuring werd uitgevoerd met een commerciële kit volgens de instructies van de fabrikant. Oplossingen A en B werden 24 u vóór het experiment gemengd. Nadat de muizen waren geëuthanaseerd, werden de hersenweefsels snel verwijderd, gespoeld met PBS en ondergedompeld in het mengsel van Oplossingen A en B. De weefsels werden 6 u bij kamertemperatuur in het donker bewaard, waarna de impregnatie-oplossing werd vervangen door een verse oplossing en de incubatie gedurende nog eens 2 weken werd voortgezet bij kamertemperatuur in het donker (minimaal 2 mL impregnatie-oplossing per hersenweefsel). De weefsels werden vervolgens overgebracht naar Oplossing C en 24 u geïncubeerd, waarna deze werd vervangen door verse Oplossing C en de incubatie nog 7 dagen werd voortgezet bij kamertemperatuur in het donker. Hersenweefsels werden met een vibratoom gesneden in coupes van 100 µm dikte. De coupes werden gemonteerd op gelatine-gecoate objectglazen en 3 dagen bij kamertemperatuur gedroogd. De objectglazen werden twee keer gespoeld met gedestilleerd water (elk 5 min) en vervolgens 15 min ondergedompeld in een mengsel van Oplossing D, Oplossing E en gedestilleerd water (verhouding 1:1:2). Na twee extra spoelgangen met gedestilleerd water (elk 5 min) werden de coupes gedehydrateerd via een reeks ethanoloplossingen (50%, 75% en 95%; elk 5 min), gevolgd door vier spoelgangen in absolute ethanol (elk 4 min) en drie spoelgangen in xyleen (elk 5 min). Tot slot werden de coupes gedekt met een montage-medium. De beelden werden vastgelegd met een microscoop en de dichtheid van de dendritische spines werd gekwantificeerd met ImageJ.
Statistische analyse
Alle resultaten werden weergegeven als gemiddelde ± SD. De gegevens werden geanalyseerd en in grafieken gezet met GraphPad Prism 8.1.0. De Student's t-test werd gebruikt om twee groepen te vergelijken. Voor vergelijkingen waarbij meerdere groepen betrokken waren, werd een eenweg-ANOVA gebruikt, waarbij paarsgewijze vergelijkingen werden uitgevoerd met de Dunnett-test. Statistische significantie werd vastgesteld op p < 0,05.
Multivariate- en correlatieanalyses
Principal component analyse (PCA) werd uitgevoerd met GraphPad Prism 8.0.1 om de groepsgewijze clustering van SASP-factoren (IL-1α, IL-1β, IL-6, IL-17A, IFN-γ, CCL3, CCL4 en CCL5) tussen de WT-, 5xFAD- en QFY-groepen (2,12 g/kg/dag) te visualiseren (n = 8 per groep). De scoreplot werd gegenereerd op basis van de eerste twee hoofdcomponenten. Er is geen datatransformatie toegepast voorafgaand aan de PCA. Pearson-correlatieanalyse werd uitgevoerd om lineaire relaties te evalueren tussen SASP-factoren en synaptische eiwitten (PSD-95, GAP-43 en SYN), evenals Aβ₁₋₄₀, Aβ₁₋₄₂ en de Aβ₁₋₄₂/Aβ₁₋₄₀-ratio. De analyse werd uitgevoerd met GraphPad Prism, met een tweezijdige significantiedrempel van p < 0,05. Correlatiematrices en een heatmap werden gegenereerd om de sterkte en richting van de associaties te visualiseren.
Resultaten
Administration of QFY enhances learning and memory in 5xFAD mice
After QFY administration, a shuttle box test was conducted to assess the conditional active avoidance response of mice (Figure 2A–C). The results showed the number of active avoidances on days 1-4 (Figure 2A, p < 0.05) and the area under the curve (AUC) of active avoidance (Figure 2B, p < 0.01) during the learning period, and the number of active avoidances (Figure 2C, p < 0.05) during the test period were significantly reduced in 5xFAD mice compared with WT mice. The administration of donepezil and memantine significantly increased the number of active avoidances on day 2 during the learning period in 5xFAD mice (Figure 2A, p < 0.05). The administration of QFY significantly increased the number of active avoidances on days 3 and 4 (Figure 2A, p < 0.05), and the AUC of active avoidance (Figure 2B, p < 0.01 in QFY high-dose group) during the learning period, and the number of active avoidances (Figure 2C, p < 0.05 in QFY low-dose group) during the test period. This data indicates that the ability to perform an active avoidance response was impaired in 5xFAD mice, whereas QFY administration improved it.
We used the Morris water maze to evaluate spatial learning and memory in mice. The results showed (Figure 2D–I) that the escape latency on the first day (Figure 2D, p < 0.05) and AUC of escape latency (Figure 2E, p < 0.01) during learning period, escape latency in testing period (Figure 2F, p < 0.05) were obviously increased in 5xFAD mice compared with WT mice, the number of platform crossings (Figure 2H, p < 0.05) was reduced significantly in 5xFAD mice compared with WT mice. The administration of donepezil and memantine significantly reduced the AUC of escape latency during the learning period (Figure 2E, p < 0.05) and during the testing period (Figure 2F, p < 0.01). The treatment of QFY significantly reduced the AUC of escape latency during the learning period (Figure 2E, p < 0.05 in QFY low-dose and high-dose groups, p < 0.01 in QFY medium-dose group) and escape latency (Figure 2F, p < 0.01 in three QFY groups) during the testing period, and also prolonged the time in the target quadrant (Figure 2G, p < 0.05 in low-dose QFY group), increased the number of crossings (Figure 2H, p < 0.05 in low-dose QFY), evidently. These results indicate spatial learning and memory deficits in 5xFAD mice and that QFY treatment ameliorated these deficits.
Administration of QFY alleviates aging in 5xFAD mice
After QFY administration, gait, grip strength, and colony nesting tests were used to evaluate mouse aging. The results (Figure 3A) showed that, compared with WT mice, run duration, run maximum variation, and the step sequence regularity index decreased significantly in 5xFAD mice (p < 0.05). Run average speed (Figure 3A, p < 0.05), right forelimb (RF) stand index (Figure 3A, p < 0.01), left hindlimb (LH) stand index (Figure 3A, p < 0.05), RF max contact (Figure 3A, p < 0.01), right hindlimb (RH) swing speed (Figure 3A, p < 0.05), LH swing speed (Figure 3A, p < 0.01) and duty cycle (FIGURE 3A, p < 0.05) in 5xFAD was significant increased. The treatment of donepezil and memantine increased RH, stand index left forelimb (LF) stand index (Figure 3A, p < 0.05) and decreased LH duty cycle (Figure 3A, p < 0.01), also reduced RH initial dual stance (Figure 3A, p < 0.05) and LH terminal dual stance (Figure 3A, p < 0.01) of 5xFAD mice. The administration of QFY reduced LH duty cycle (Figure 3A, p < 0.05 in QFY low- and p < 0.01 in medium-dose group), RH initial dual stance (Figure 3A, p < 0.05 in QFY low-dose and high-dose group, p < 0.01 in QFY medium-dose group) and LH terminal dual stance (Figure 3A, p < 0.05 in QFY low-dose group, p < 0.01, in QFY medium- and high-dose group), also increased the run duration (Figure 3A, p < 0.05 in QFY low-and medium-dose group), run maximum variation (Figure 3A, p < 0.05 in QFY low- and medium-dose group), step sequence regularity index (Figure 3A, p < 0.01 in QFY low- and medium-dose group), LF stand index (Figure 3A, p < 0.05 in QFY low-dose group) and LH stand index (Figure 3A, p < 0.05 in QFY low-dose group) of 5xFAD mice. These results indicate that 5xFAD mice exhibited an abnormal gait, which QFY treatment restored.
After QFY administration, a grip-strength test was conducted to assess forelimb strength. The experimental data (Figure 3B) show that the forelimb strength of the 5xFAD mice was significantly weaker than that of WT mice (p < 0.01). The administration of donepezil and memantine (Figure 3B, p < 0.01), QFY (Figure 3B, p < 0.01, in QFY low-dose and high-dose groups) significantly increased the grip strength of the 5xFAD mice. These studies suggest that forelimb strength in 5xFAD mice has been enhanced by QFY treatment.
The results of colony nesting test showed (Figure 3C–G) that the nesting score of the 5xFAD mice were significantly lower than the WT mice at 6 h (Figure 3C, p < 0.05), 12 h and 24 h after the start of colony nesting (Figure 3DE, p < 0.01), and the untorn tissue weight was significantly higher of 5xFAD mice (Figure 3F, p < 0.01). Administration with donepezil and memantine just decreases the untorn tissue weight (Figure 3F, p < 0.01). The treatment with QFY increased nesting scores at 12 h (Figure 3D; QFY p < 0.05 in the QFY medium-dose group) and 24 h (Figure 3E; QFY p < 0.05 in the QFY low- and medium-dose groups). Moreover, the untorn tissue weight was significantly lower in the QFY low- and medium-dose groups (Figure 3F, p < 0.01) and in the QFY high-dose group (Figure 3F, p < 0.05). These results indicated that QFY treatment enhanced daily activity in 5xFAD mice.
Treatment of QFY reduces the synaptic structure damage in the cerebral cortex of 5xFAD mice
After QFY treatment, the cerebral cortex of mice was collected to measure the protein levels of GAP-43, PSD-95, and SYN by ELISA. The results (Figure 4A–C) showed that the contents of GAP-43 (Figure 4A, p < 0.05), PSD-95 (Figure 4B, p < 0.01), and SYN (Figure 4C, p < 0.01) in the cerebral cortex of the 5xFAD mice were significantly lower than those in WT mice. The protein content of GAP-43 (Figure 4A, p < 0.05), PSD-95 (Figure 4B, p < 0.01), and SYN (Figure 4C, p < 0.01) significantly increased after the treatment of QFY. The results of Golgi-Cox staining (Figure 4D) showed that the length of dendrites in the cerebral cortex of the 5xFAD mice was shorter (Figure 4G, p < 0.05) than that of WT mice. The treatment with QFY tended to increase the length, number, and density of dendritic spines.
Treatment of QFY reduced Aβ deposition and cellular senescence in the brains of 5xFAD mice
Aβ deposition and cellular senescence play important roles in AD pathogenesis. We used a combination of SA-β-Gal staining and Aβ immunohistochemistry to assess co-localization between SA-β-Gal and Aβ plaques. The result showed there was a large amount of SA-β-Gal aggregation and Aβ plaque deposition in the cerebral cortex of 5xFAD mice (Figure 5A), while only a few SA-β-Gal aggregations and Aβ plaque depositions were found after QFY treatment (Figure 5A). In addition, there was co-localization of SA-β-Gal and Aβ plaque.
Immunofluorescence assays revealed that 5xFAD mice brains were heavily laden with both Aβ plaques and p21-positive cells (Figure 5B,C). Administration of QFY significantly curtailed cortical Aβ plaque and attenuated p21 expression in these animals (Figure 5B,C). The results of ELISA showed that compared with WT mice, the content of Aβ1-42 and the ratio of Aβ1-42/ AΒ1-40 was significantly increased in the hippocampus of 5xFAD mice (Figure 5D,F, p < 0.01), while the treatment of QFY reduced them obviously (Figure 5D, p < 0.01; Figure 5F, p < 0.05, respectively).
Senescent cells typically secrete large amounts of SASP factors. The results of Luminex analysis showed the contents of IL-1α (Figure 5G, p < 0.05), IL-1β (Figure 5H, p < 0.01), IL-17A (Figure 5J, p < 0.05), CCL3 (Figure 5K, p < 0.01), CCL4 (Figure 5L, p < 0.01), CCL5 (Figure 5M, p < 0.01) and IFN-γ (Figure 5N, p < 0.01) were significantly increased in cortex of 5xFAD mice. QFY treatment decreased the contents of IL-1α (Figure 5G, p < 0.05), IL-1β (Figure 5H, p < 0.05), IL-6 (Figure 5I, p < 0.05), IL-17A (Figure 5J, p < 0.05), and IFN-γ (Figure 5N, p < 0.01) in the cortex significantly.
These data indicate that cellular senescence appeared in the brain of 5xFAD mice, while the treatment of QFY reduced cellular senescence in 5xFAD mice.
Effects of QFY ameliorating cognitive impairment and reducing the aging of brain cells in 5xFAD mice correlated with synaptic damage
Principal component analysis (PCA) was performed to assess the overall SASP expression profiles (IL‑1α, IL‑1β, IL‑6, IL‑17A, CCL3, CCL4, CCL5, and IFN‑γ) among WT, 5xFAD, and QFY‑treated groups (Figure 6A). The first two principal components accounted for 44.11% and 23.46% of the total variance, respectively. As shown in the PCA score plot (Figure 6A), the WT group was clearly separated from the 5xFAD group. Notably, the QFY‑treated group showed an intermediate position, clustering more closely with the WT group than with the 5xFAD group, suggesting partial normalization of the SASP profile after QFY treatment. Statistical analysis of PC1 scores (Figure 6B) revealed that the 5xFAD group exhibited significantly higher PC1 values than the WT group. PC2 scores (Figure 6C) also showed significant differences between the 5xFAD and WT groups. Loading plot analysis (Figure 6D) indicated that IL‑1α, IL‑1β, and IFN‑γ were the major contributors to PC1, whereas IL‑6 and CCL3 contributed more substantially to PC2.
We performed Pearson correlation analyses between IL-1α, IL-1β, and IFN-γ and the contents of PSD-95, GAP-43, and SYN in the cortex, as well as the contents of Aβ1-40 and Aβ1-42 and the ratio of Aβ1-42/Aβ1-40 in the hippocampus, and developed heatmaps to visualize the interplay between synaptic-associated protein and SASP function. IL-1α, IL-1β, and IFN-γ levels positively correlated with the contents of Aβ1-40 and Aβ1-42 and the ratio of Aβ1-42/Aβ1-40 (Figure 6E, p < 0.05), and negatively correlated with the content of SYN protein. The levels of IL-1α and IFN-γ were negatively correlated with the content of GAP-43 protein, and IL-1β was negatively correlated with PSD-95 protein (Figure 6E, p < 0.05). These data suggest that IL-1α, IL-1β, and IFN-γ are major contributors to synaptic dysfunction.
Data Availability:
All raw data supporting the findings of this study have been deposited in Figshare and are accessible via the private reviewer link: https://doi.org/10.6084/m9.figshare.33208029.
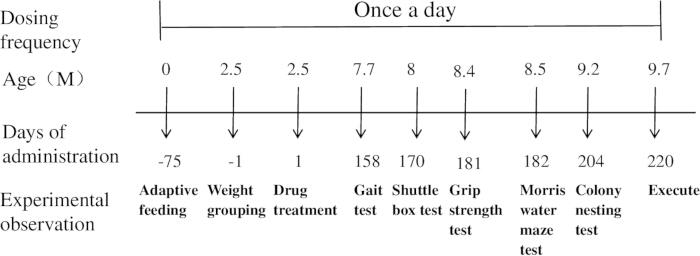
Figure 1: Schematic diagram of the experimental procedure. Please click here to view a larger version of this figure.
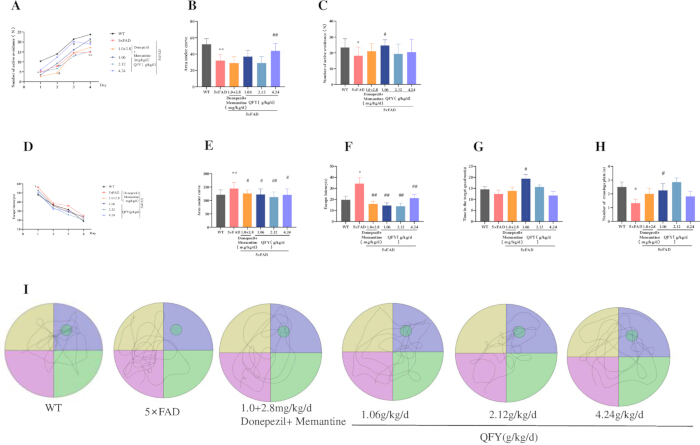
Figure 2: QFY administration improves learning and memory performance in 5xFAD mice. (A–C) Shuttle box test: (A) Number of active avoidance responses during the learning period. (B) Area under the curve (AUC) for active avoidance responses during the learning period. (C) Number of active avoidance responses during the test period. (D–I) Morris water maze test: (D) Escape latency during the learning period. (E) AUC for escape latency during the learning period. (F) Escape latency during the test period. (G) Time spent in the target quadrant. (H) Number of platform crossings. (I) Movement trajectories during the test period. Mean ± SD, n = 11–20 per group, with exact n indicated in each bar. * = p < 0.05, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5xFAD; One-way ANOVA followed by Dunnett's multiple comparisons test. Please click here to view a larger version of this figure.
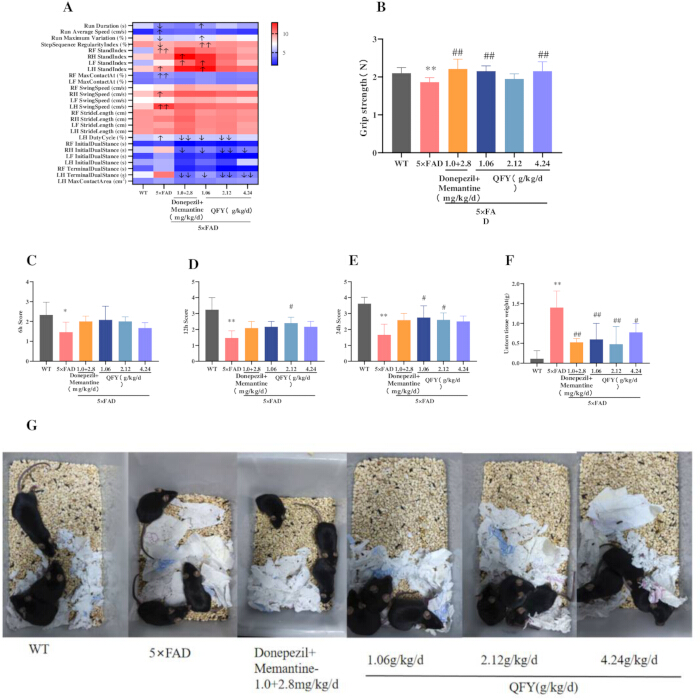
Figure 3: Effects of QFY administration on aging-associated functional measures in 5xFAD mice. (A) Gait heat map. The color scale is based on row‑wise Z‑score normalization, where red indicates values above the group mean, blue indicates values below the group mean, and white represents the mean level. (B) Grip strength test. (C–G) Colony nesting test: (C) Nesting score 6 h, (D) Nesting score at 12 h. (E) Nesting score at 24 h. (F) Untorn tissue weight. (G) Representative images of nests at 24 h. Mean ± SD, n = 3 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5x FAD, One-way ANOVA followed by Dunnett's multiple comparisons test. Please click here to view a larger version of this figure.
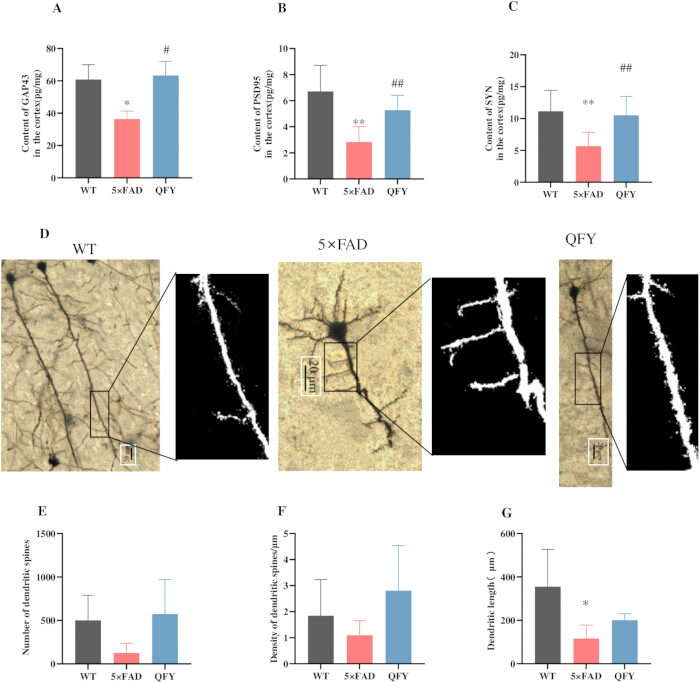
Figure 4: QFY attenuates synaptic structural alterations in the cerebral cortex of 5xFAD mice. (A) Content of GAP-43 in the cortex. (B) Content of PSD-95 in the cortex. (C) Content of SYN in the cortex. (D) Golgi-Cox staining. (E) Number of dendritic spines. (F) Density of dendritic spines. (G) Dendritic length. Mean ± SD, n = 3–14 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student`s t-test; # = p < 0.05, ## = p < 0.01, vs 5xFAD, Student`s t-test. Please click here to view a larger version of this figure.
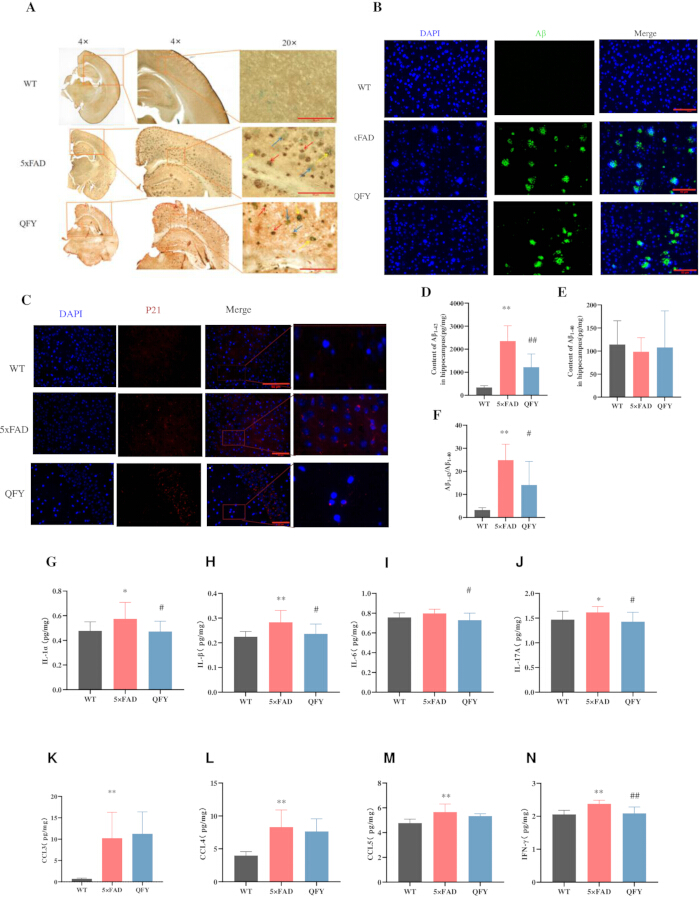
Figure 5: QFY reduced Aβ deposition and cell senescence in the brains of 5xFAD mice. (A) Combined SA-β-Gal staining and Aβ immunohistochemistry, SA-β-Gal (green, blue arrow), Aβ (brown, red arrow), SA-β-Gal + Aβ (yellow arrow), n = 3, Scale bar = 10 µm, 20x objective. (B) Immunofluorescence images showing Aβ in the cerebral cortex after treatment of QFY, n = 3, Scale bar = 50 µm, 40x objective. (C) Immunofluorescence images showing p21in the cerebral cortex after treatment of QFY. n = 1, Scale bar = 50 µm, 40x objective. (D–F) ELISA. (D) Content of Aβ1-42 in the hippocampus. (E) Content of Aβ1-40 in the hippocampus. (F) Aβ1-42/ Aβ1-40. (G–N) Luminex cytokine analysis. (G) Content of IL-1α in the cortex. (H) Content of IL-1β in the cortex. (I) Content of IL-6 in the cortex. (J) Content of IL-17A in the cortex. (K) Content of CCL3 in the cortex. (L) Content of CCL4 in the cortex. (M) Content of CCL5 in the cortex. (N) Content of IFN-γ in the cortex. Mean ± SD, n = 8–14 per group, with exact n indicated in each bar. * = p < 0.05, ** = p < 0.01, vs WT, Student’s t-test; # = p < 0.05 ## = p < 0.01, vs 5xFAD, Student’s t-test. Please click here to view a larger version of this figure.
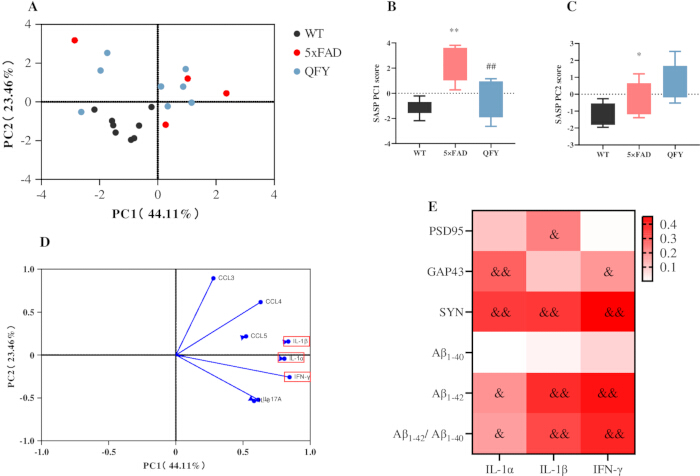
Figure 6: Principal component and correlation analyses of SASP factors, synaptic proteins, and Aβ levels in 5xFAD mice following QFY treatment. (A–D) Principal component analysis (PCA) of SASP factors. (A) PCA score plot. (B) PC1 scores. (C) PC2 scores. (D) PCA loading plot. (E) Heatmap generated from the correlation analysis between the SASP and PSD-95, GAP-43, SYN, Aβ1-40, Aβ1-42, and the ratio of Aβ1-42/Aβ1-40. Colors closer to red indicate higher R-values, while colors closer to white indicate lower R-values. Mean ± SD; n = 8 per group. * = p < 0.05, ** = p < 0.01,vs WT; ## = p < 0.01, vs 5xFAD, & = p < 0.05, && = p < 0.01, indicates a significant correlation. Pearson correlation analysis was used to assess associations between variables. Please click here to view a larger version of this figure.
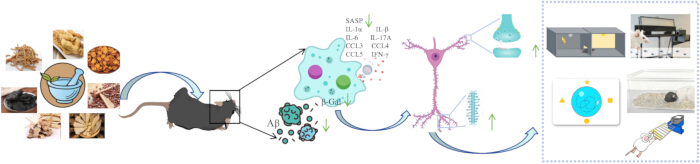
Figure 7: Proposed model of the effects of QFY on age-related cognitive decline and cellular senescence-associated phenotypes in 5xFAD mice. Please click here to view a larger version of this figure.
Discussie
Neurale synaptische plasticiteit speelt een sleutelrol bij de cognitieve functie. In de hersenen van patiënten met AD verspreiden Aβ-afzettingen zich over verschillende regio's, wat direct leidt tot structurele synaptische schade, verlies van excitatoire synapsen en cognitieve achteruitgang28. GAP-43 (een presynaptisch membraaneiwit)29, PSD-95 (een steuneiwit gelokaliseerd in het postsynaptische membraan)30 en SYN (een fosfo-eiwit geassocieerd met synaptische blaasjes)31 spelen een belangrijke rol in de plasticiteit van de synaptische structuur en de pathogenese van AD32. De huidige studie wees uit dat behandeling met QFY het leren en geheugen verbeterde, de Aβ-plaquebelasting verminderde en de synaptische structuur herstelde door het aantal dendritische stekels en de eiwitniveaus van GAP-43, PSD-95 en SYN in de hersenen van 5xFAD-muizen te verhogen.
Veroudering is een cruciale risicofactor bij de ontwikkeling van AD en bevordert de productie van Aβ. De kenmerken van veroudering omvatten afgenomen spierkracht, een instabiel gangbeeld en een beperking van basisactiviteiten in het dagelijks leven33,34. Cellulaire senescentie, gekenmerkt door SA-β-Gal, is naar meldingen geassocieerd met veroudering en het begin van ouderdomsgerelateerde ziekten, zoals AD11,35. Selectieve eliminatie van cellulaire senescentie verlengt de gezonde levensduur en vertraagt ouderdomsgerelateerde ziekten36. Verwijdering van senescente cellen via genetische of farmacologische benaderingen verminderde de Aβ-depositie en verbeterde de leer- en geheugenfunctie in AD-modelmuizen37. Combinatietherapie met Dasatinib en Quercetine (D+Q) vermindert de senescentie van oligodendrocyte-progenitorcellen, verlicht neuro-inflammatie, vermindert Aβ-plaques en SA-β-Gal-activiteit, en voorkomt Aβ-accumulatie en cognitieve stoornissen bij APP/PS1-muizen37. Memantine-behandeling verminderde de SA-β-Gal-activiteit in de hersenen van SAMP8-muizen significant en verbeterde het ruimtelijk leren en geheugen; hetzelfde effect werd waargenomen bij de combinatie van memantine en donepezil38. De huidige studie wees uit dat QFY-behandeling het gangbeeld verbeterde, de spieren van de voorpoten versterkte en de vaardigheden in basisactiviteiten in het dagelijks leven verbeterde, in het bijzonder door cellulaire senescentie te verlichten, zoals aangetoond door SA-β-Gal-kleuring in de hersenen van 5xFAD-muizen.
Zowel AD-patiënten als diermodellen vertonen senescente astrocyten, microglia, endotheelcellen en neuronen39,40. De secretie van SASP, waaronder chemokines en inflammatoire cytokinen, is een kenmerkend aspect van cellulaire senescentie; overmatige SASP-secretie kan leiden tot chronische inflammatie, wat resulteert in weefselschade en cellulaire senescentie41. De continue secretie van SASP, waaronder IL-1α, IL-1β, IL-6, IL-8, IFN-γ, CCL2, CCL3, CCL4, CCL5, CXCL1, enz., bevordert chronische inflammatie, paracriene senescentie van normale cellen, veranderingen in het cellulaire metabolisme en epigenetische regulatie, en de continue productie van Aβ42,43,44,45. De spiegels van IL-1α, IL-1β, IL-6, IL-17A en IFN-γ zijn significant verhoogd in de hersenen van AD-patiënten en AD-modellen46. Studies hebben aangetoond dat D+Q de secretie van inflammatoire factoren kan remmen, waaronder IL-1α en IFN-γ, en de Aβ-plaques en SA-β-Gal-activiteit in APP/PS1-muizen kan verminderen37. Uit de studie bleek dat QFY de expressie van verschillende SASP-factoren verminderde, waaronder IL-1α, IL-1β, IL-6, IL-17A en IFN-γ, waardoor het senescente inflammatoire fenotype werd afgezwakt.
p21 behoort tot de CIP/KIP-familie van cycline-afhankelijke kinase-remmers en fungeert als een proximale rem op cycline-CDK2/4-complexen, waardoor G1/G2-arrest wordt afgedwongen bij cellulaire stress, DNA-schade en veroudering. Een aanhoudende stijging van de p21-abundantie wordt algemeen geïnterpreteerd als de overgang naar een stabiel senescent programma47,48. Opkomende gegevens onthullen dat 5xFAD-muizen een ongewoon hoge cerebrale p21-last hebben, die duidelijk wordt verminderd na co-behandeling met D+Q49. In overeenstemming hiermee stelde de huidige studie vast dat toediening van QFY de corticale Aβ-plaques significant reduceerde en de p21-expressie bij deze dieren verminderde.
Collectief suggereren deze bevindingen een associatie tussen QFY-behandeling en verbeteringen in ouderdomsgerelateerde cognitieve achteruitgang en cellulaire senescentie-fenotypen bij 5xFAD-muizen, samen met verminderde synaptische structurele schade (Figuur 7).
Verschillende beperkingen van deze studie moeten worden erkend. Ten eerste werden alleen mannelijke 5xFAD-muizen gebruikt, en het moet nog worden vastgesteld of de waargenomen effecten geslachtsafhankelijk zijn. Ten tweede, hoewel de huidige gegevens sterke associaties aantonen tussen verminderde senescentie-gerelateerde fenotypes en cognitieve verbetering, hebben we geen directe mechanistische interventie-experimenten uitgevoerd om causaliteit vast te stellen. Ten derde is de translationele relevantie van de bevindingen voor humane AD beperkt door soortverschillen en het gebrek aan klinische farmacokinetische gegevens. Toekomstige studies met vrouwelijke dieren, senescentie-specifieke interventies en goed ontworpen klinische trials zijn gerechtvaardigd om de bevindingen uit te breiden.
Openbaarmakingen
De auteurs hebben geen belangenconflicten te melden.
Dankbetuigingen
Dit werk werd ondersteund door beurzen van de National Natural Science Foundation of China (82205078, 82374062), de Shandong Provincial Natural Science Foundation (ZR2026MS1293, ZR2021QH157), het Shandong Province Traditional Chinese Medicine Science and Technology Project (M20251730), de Science and Technology Projects of Xizang Autonomous Region, China (XZ202601ZY0167), en het Shandong Province Technology Innovation Guidance Program (Central Government-Guided Local Science and Technology Development Fund) (YDZX2023137), met het project getiteld 'Development and Industrialization Research of Tongli Enteric‑Coated Capsules as a Class 1 New Traditional Chinese Medicine'.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Farmaceutica | |||
| Donepezil | Shanghai Yuanye Technology | lot.J15HB188725 | |
| Memantine | Shanghai Yuanye Technology | lot. J21HB189391 | |
| Qi-fu-yin | Lunan Pharmaceutical Houpu Research and Development Center | lot. 2209001 | |
| Gedragstests | |||
| CatWalk XT | Noldus | CatWalkXT 10.0-software | |
| Gripkrachtmeter | Bileadbiosci | BLD-ZL-20 | |
| Morris water maze | Shanghai Xinruan Information Technology Co., Ltd | 120 cm | |
| Shuttle-box | Shanghai Xinruan Information Technology Co., Ltd | XR-XC404 | |
| Antilichamen | |||
| Anti-Aβ1-42 antilichaam | Abcam | Cat# ab201061 | |
| Anti-p21/CIP1/CDKN1A-antilichaam | Novus Biologicals | Cat# NBP3-15661 | |
| Assaykits | |||
| Aβ1-40 ELISA-kit | Thermo Fisher Scientific | Cat# KHB3482 | |
| Aβ1-42 ELISA-kit | Thermo Fisher Scientific | Cat# KHB3442 | |
| Bio-Plex Pro Mouse Cytokine 23-plex Assay kit | R&D-systemen | Cat# LXLBM23-1 | |
| GAP-43 ELISA-kit | Enzym-immunoassayindustrie van Jiangsu | Cat# MM-47506M1 | |
| Golgi-Cox kleuringskit | BeiJing Biolead Biology Sci & Tech Co | Cat# PK401 | |
| PSD-95 ELISA-kit | Enzym-immunoassayindustrie in Jiangsu | Cat# MM-45953M1 | |
| Senescentie β-Galactosidase-kleuringskit | Beyotime | Cat# C0602 | |
| Synaptophysine (SYN) ELISA-kit | Enzym-immunoassayindustrie in Jiangsu | Cat# MM-46504M1 | |
| Chemicaliën & Reagentia | |||
| Anti-konijn- en -muis IgG (secundair antilichaam) | Starter | Cat# S0C1001 | |
| DAB-chromogeen | Starter | Cat# S0C1001 | |
| Software | |||
| CatWalk XT | Noldus Information Technology | Versie 10.0 | |
| ImageJ | National Institutes of Health (NIH) | Versie 1.53 |
Referenties
- Joe E, Ringman JM. Cognitive symptoms of Alzheimer's disease: clinical management and prevention. BMJ. 2019;367:l6217.
- Scheff SW, et al. Synaptic alterations in CA1 in mild Alzheimer disease and mild cognitive impairment. Neurology. 2007;68(18):1501-8.
- Muralidar S, et al. Role of tau protein in Alzheimer's disease: the prime pathological player. Int J Biol Macromol. 2020;163:1599-617.
- Hardy JA, Higgins GA. Alzheimer's disease: the amyloid cascade hypothesis. Science. 1992;256(5054):184-5.
- Calsolaro V, Edison P. Neuroinflammation in Alzheimer's disease: current evidence and future directions. Alzheimers Dement. 2016;12(6):719-32.
- Campisi J. Senescent cells, tumor suppression, and organismal aging: good citizens, bad neighbors. Cell. 2005;120(4):513-22.
- Yao R. An in-silico assessment suggests the potential effects of goji (fruit of Lycium barbarum L.) against aging-related diseases. Food Med Homol. 2025;2(2):9420036.
- Campisi J, d'Adda di Fagagna F. Cellular senescence: when bad things happen to good cells. Nat Rev Mol Cell Biol. 2007;8(9):729-40.
- Salminen A, Kaarniranta K, Kauppinen A. ER stress activates immunosuppressive network: implications for aging and Alzheimer's disease. J Mol Med (Berl). 2020;98(5):633-50.
- Mirabella F, et al. Prenatal interleukin 6 elevation increases glutamatergic synapse density and disrupts hippocampal connectivity in offspring. Immunity. 2021;54(11):2611-31.e8.
- Baker DJ, Petersen RC. Cellular senescence in brain aging and neurodegenerative diseases: evidence and perspectives. J Clin Invest. 2018;128(4):1208-16.
- Lucas V, Cavadas C, Aveleira CA, Hook V. Cellular senescence: from mechanisms to current biomarkers and senotherapies. Pharmacol Rev. 2023;75(4):675-713.
- Bloss EB, et al. Evidence for reduced experience-dependent dendritic spine plasticity in the aging prefrontal cortex. J Neurosci. 2011;31(21):7831-9.
- Ye XS, et al. The food and medicine homologous Chinese medicine from Leguminosae species: a comprehensive review on bioactive constituents with neuroprotective effects on nervous system. Food Med Homol. 2025;2(2):9420033.
- Dickstein DL, Weaver CM, Luebke JI, Hof PR. Dendritic spine changes associated with normal aging. Neuroscience. 2013;251:21-32.
- Wang SY, et al. Qifu-Yin attenuates AGEs-induced Alzheimer-like pathophysiological changes through the RAGE/NF-kappaB pathway. Chin J Nat Med. 2014;12(12):920-8.
- Yang X, et al. Qi-fu-yin attenuated cognitive disorders in 5xFAD mice of Alzheimer's disease animal model by regulating immunity. Front Neurol. 2023;14:1183764.
- Xiao QY, et al. Effects of Qi-Fu-Yin on aging of APP/PS1 transgenic mice by regulating the intestinal microbiome. Front Cell Infect Microbiol. 2023;12:1048513.
- Chen K, et al. Safety and toxicity of Qi-Fu Yin, a classical traditional Chinese medicine prescription: a nonclinical research. J Appl Toxicol. 2025;45(9):1811-38.
- Wang L, Qiao P, Yue L, Sun R. Is Qi Fu Yin effective in clinical treatment of dementia? A meta-analysis of 697 patients. Medicine (Baltimore). 2021;100(5):e24526.
- Li H, et al. Identification of chemical components of Qi-Fu-Yin and its prototype components and metabolites in rat plasma and cerebrospinal fluid via UPLC-Q-TOF-MS. Evid Based Complement Alternat Med. 2021;2021:1995766.
- Lei X, et al. Integrating network pharmacology and component analysis to study the potential mechanisms of Qi-Fu-Yin Decoction in treating Alzheimer's disease. Drug Des Devel Ther. 2023;17:2841-58. doi:10.2147/DDDT.S402624.
- Takeshita H, et al. Modified forelimb grip strength test detects aging-associated physiological decline in skeletal muscle function in male mice. Sci Rep. 2017;7:42323.
- Caggiano V, et al. Midbrain circuits that set locomotor speed and gait selection. Nature. 2018;553(7689):455-60.
- Ehret B, et al. Population-level coding of avoidance learning in medial prefrontal cortex. Nat Neurosci. 2024;27(9):1805-15.
- Curdt N, et al. Search strategy analysis of Tg4-42 Alzheimer mice in the Morris water maze reveals early spatial navigation deficits. Sci Rep. 2022;12:5451.
- Deacon RMJ. Assessing nest building in mice. Nat Protoc. 2006;1(3):1117-9.
- Tu S, Okamoto SI, Lipton SA, Xu H. Oligomeric Aβ-induced synaptic dysfunction in Alzheimer's disease. Mol Neurodegener. 2014;9:48.
- Benowitz LI, Routtenberg A. GAP-43: an intrinsic determinant of neuronal development and plasticity. Trends Neurosci. 1997;20(2):84-91.
- Dore K, et al. PSD-95 protects synapses from β-amyloid. Cell Rep. 2021;35(9):109194.
- Kokotos AC, et al. Synaptophysin sustains presynaptic performance by preserving vesicular synaptobrevin-II levels. J Neurochem. 2019;151(1):28-37.
- Martin SB, et al. Synaptophysin and Synaptojanin-1 in Down syndrome are differentially affected by Alzheimer's disease. J Alzheimers Dis. 2014;42(3):767-75.
- Namioka N, et al. Oxidative stress and inflammation are associated with physical frailty in patients with Alzheimer's disease. Geriatr Gerontol Int. 2016;17(6):913-8.
- Kojima G, Liljas A, Iliffe S, Walters K. Prevalence of frailty in mild to moderate Alzheimer's disease: a systematic review and meta-analysis. Curr Alzheimer Res. 2017;14(12):1256-63.
- Dimri GP, et al. A biomarker that identifies senescent human cells in culture and in aging skin in vivo. Proc Natl Acad Sci U S A. 1995;92(20):9363-7.
- Baker DJ, et al. Naturally occurring p16Ink4a-positive cells shorten healthy lifespan. Nature. 2016;530(7589):184-9.
- Zhang P, et al. Senolytic therapy alleviates Abeta-associated oligodendrocyte progenitor cell senescence and cognitive deficits in an Alzheimer's disease model. Nat Neurosci. 2019;22(5):719-28.
- Ota H, Ogawa S, Ouchi Y, Akishita M. Protective effects of NMDA receptor antagonist, memantine, against senescence of PC12 cells: a possible role of nNOS and combined effects with donepezil. Exp Gerontol. 2015;72:109-16.
- Herdy JR, et al. Increased post-mitotic senescence in aged human neurons is a pathological feature of Alzheimer's disease. Cell Stem Cell. 2022;29(12):1637-52.e6.
- Hu Y, et al. Replicative senescence dictates the emergence of disease-associated microglia and contributes to Abeta pathology. Cell Rep. 2021;35(10):109228.
- Tchkonia T, et al. Cellular senescence and the senescent secretory phenotype: therapeutic opportunities. J Clin Invest. 2013;123(3):966-72.
- Guerrero A, De Strooper B, Arancibia-Cárcamo IL. Cellular senescence at the crossroads of inflammation and Alzheimer's disease. Trends Neurosci. 2021;44(9):714-27.
- Acosta JC, et al. A complex secretory program orchestrated by the inflammasome controls paracrine senescence. Nat Cell Biol. 2013;15(8):978-90.
- Wang B, Han J, Elisseeff JH, Demaria M. The senescence-associated secretory phenotype and its physiological and pathological implications. Nat Rev Mol Cell Biol. 2024;25(12):958-78.
- Gaikwad S, Senapati S, Haque MA, Kayed R. Senescence, brain inflammation, and oligomeric tau drive cognitive decline in Alzheimer's disease: evidence from clinical and preclinical studies. Alzheimers Dement. 2024;20(1):709-27.
- Si Z, Sun L, Wang X. Evidence and perspectives of cell senescence in neurodegenerative diseases. Biomed Pharmacother. 2021;137:111327.
- Chen X, et al. Senescence-like changes induced by expression of p21Waf1/Cip1 in NIH3T3 cell line. Cell Res. 2002;12(3-4):229-33.
- Engeland K. Cell cycle regulation: p53-p21-RB signaling. Cell Death Differ. 2022;29(5):946-60.
- Choi I, et al. Autophagy enables microglia to engage amyloid plaques and prevents microglial senescence. Nat Cell Biol. 2023;25(7):963-74.