Dit protocol beschrijft de extracellulaire elektrofysiologische registratie van visueel opgewekte zwempacemakersignalen uit het geïsoleerde rhopalium van de dooskwalle Tripedalia cystophora, wat een kwantitatieve uitlezing biedt van het obstakelvermijdingsgedrag voor nauwkeurig onderzoek naar visuele informatieverwerking en sensorimotorische integratie.
Methodenartikel
Extracellulaire elektrofysiologische registratie van visueel opgewekte zwempacemakersignalen uit het geïsoleerde rhopalium van Tripedalia cystophora
In dit artikel
Samenvatting
Samenvatting
De kubusjellyvis Tripedalia cystophora combineert beeldvormende lensogen en goed gekarakteriseerde, visueel gestuurde gedragingen met een hanteerbaar rhopaliaal zenuwstelsel van ongeveer 1000 neuronen, waardoor het een opkomend model is voor onderzoek op systeemniveau naar visuele informatieverwerking en sensorimotorische integratie. Zwempacemakerneuronen genereren motorische commando's die direct de samentrekkingen van de klok regelen; deze signalen kunnen extracellulair worden geregistreerd vanuit de epidermale steelzenuw van een geïsoleerd rhopalium, wat een kwantitatieve maatstaf biedt voor visueel gedreven motorische output. De sterkte van de pacemakerrespons, gekwantificeerd als gestandaardiseerde neurale activiteit afgeleid van het aantal pacemakersignalen en de instantane frequentie, schaalt met het stimuluscontrast boven de beslissingsdrempel (decision transition threshold, DTT), wat een graduele evaluatie van visueel gedreven sensorimotorische integratie mogelijk maakt. In dit protocol behandelen we de fabricage van extracellulaire zuigelektroden, de isolatie van het rhopalium, de configuratie van de registratiekamer, het aanbieden van visuele stimuli aan het onderste lens-oog, de verificatie van de timing van de stimulus op hardwareniveau, de plaatsing van de elektrode op de epidermale steelzenuw en de gesynchroniseerde acquisitie van elektrofysiologische gegevens en stimulusgegevens met behulp van standaard laboratoriumapparatuur.
Inleiding
Het begrijpen van hoe zenuwstelsels sensorische informatie verwerken en vertalen naar adaptief gedrag is een centrale uitdaging in de neurowetenschappen. Er is aanzienlijke vooruitgang geboekt bij grote, complexe modelorganismen, zoals Drosophila melanogaster, waarvan het brein van ongeveer 200.000 neuronen een gedetailleerde dissectie van de organisatie van neurale circuits mogelijk heeft gemaakt1, naast andere genetisch hanteerbare modellen met geavanceerde imaging- en circuit-mappingtools. De complexiteit van deze systemen maakt het echter moeilijk om een volledig, systeembreed begrip te verkrijgen van de relatie tussen sensorische input, neurale berekening en gedragsoutput. Aan de andere kant van het complexiteitsspectrum bieden kleine, volledig in kaart gebrachte systemen, zoals die van Caenorhabditis elegans, bestaande uit 302 neuronen2, naast andere modellen met een minimaal aantal neuronen, een hanteerbare omvang, maar zij missen beeldvormende ogen en de visueel gestuurde gedragingen die daarvan afhankelijk zijn.
Tripedalia cystophora, de Caribische doosjellyfish (Figuur 1A), ontwikkelt zich tot een modelsysteem voor visuele informatieverwerking en sensorimotore integratie op systeemniveau, waarbij het een onderscheidende positie tussen deze extremen inneemt3. Het hier beschreven protocol (Figuur 1) is ontworpen om het volledige experimentele potentieel van dit dier toegankelijk te maken voor de bredere neurowetenschappelijke gemeenschap.
T. cystophora beschikt over een visueel systeem van opmerkelijke complexiteit voor een dier met deze neuronale structuur. Elk van de vier sensorische structuren, genaamd rhopalia, bevat zes ogen, waaronder twee beeldvormende lensogen: het bovenste lensoog (ULE) en het onderste lensoog (LLE)4 (Figuur 1B). Dit zijn geen eenvoudige fotoreceptieve organen — ze zijn uitgerust met een lens met een gradiëntindex van het Matthiessen-type, een lensontwerp dat ook in de ogen van vertebraten wordt aangetroffen, en een everte retina waarin ongeveer 600 fotoreceptoren in het LLE en 400 in het ULE direct verbonden zijn met neuronen van tweede orde5,6,7. De moleculaire samenstelling van het fotoreceptieve mechanisme, inclusief cnidops-opsines die homoloog zijn aan de c-opsines van vertebraten en geassocieerde fototransductiecomponenten8,9,10, suggereert sterk dat dit hyperpolariserende fotoreceptoren zijn, waardoor het visuele systeem van T. cystophora in dezelfde brede functionele categorie valt als het oog van vertebraten, ondanks de onafhankelijke evolutionaire oorsprong.
Cruciaal is dat deze optische investeringen worden gecombineerd met complexe, experimenteel karakteriseerbare, visueel gestuurde gedragingen. T. cystophora navigeert door het optisch complexe mangrovehabitat met behulp van navigatie over lange afstanden en de detectie van lichtstralen om de positie binnen het habitat te behouden11,12, en obstakelvermijdingsgedrag om rond ondergedompelde steunwortels te navigeren12,13,14. Het neuro-ethologische kader ten grondslag aan dit werk stelt dat gedrag de enige geldige weergave is van sensorische verwerking bij niet-talige dieren. Omdat we dieren niet kunnen vragen wat ze waarnemen, moet het experimentele ontwerp worden aangepast aan stimuli die het dier kan detecteren en begrijpen, en aan gedragingen die het dier in staat is uit te voeren. Dit impliceert dat experimentele vragen moeten worden geformuleerd in termen van het dier, niet in die van de onderzoeker. Het obstakelvermijdingsgedrag van T. cystophora illustreert dit principe. De epidermis van de dooskwal is slechts één cellaag dik, waardoor een botsing met een ondergedompelde steunwortel potentieel fataal kan zijn door schade aan het fragiele lichaam. Aangezien inter-rhopaliale integratie alleen stroomafwaarts via de ringzenuw plaatsvindt15, ontvangt geen enkel rhopaliaal zenuwstelsel (RNS) de overlappende binoculaire input die nodig is om diepte te berekenen op basis van stereoscopische dispariteit. In plaats daarvan maakt het dier gebruik van een fundamentele eigenschap van onderwateroptica: het contrast tussen een object en het omringende water neemt snel af naarmate de afstand toeneemt. Een obstakel met een hoog contrast is dus een dichtbijgelegen obstakel, dat een onmiddellijke dreiging vormt, terwijl een obstakel met een laag contrast ver weg is en nog niet bedreigend is. Het dier gebruikt contrast als een proxy voor afstand16. Bij vrij bewegende dieren is het obstakelvermijdingsgedrag (OAB) gebaseerd op een go/no-go-beslissing; een gebeurtenis wordt getriggerd wanneer het dier een onderwaterobstakel detecteert waarvan het contrast de drempelwaarde voor de beslissingsovergang (decision transition threshold, DTT) overschrijdt, de drempel waarbij het obstakel dichtbij genoeg is om een dreiging te vormen, waarna de go-respons wordt ingezet: 3–5 snelle samentrekkingen van de klok, een draai van 120–180° en snel wegzwemmen van het obstakel14 (Figuur 1C). De gegradeerde pacemaker-respons boven de DTT weerspiegelt de mate van urgentie van de dreiging16. Het OAB biedt hiermee een zeer hanteerbare gedragsmatige assay voor sensorimotorische integratie: één enkele, goed gedefinieerde visuele parameter (contrast) reguleert een stereotype, kwantificeerbare motorische output, wat het een ideaal systeem maakt voor het onderzoeken van de neurale basis van visueel gestuurde besluitvorming.
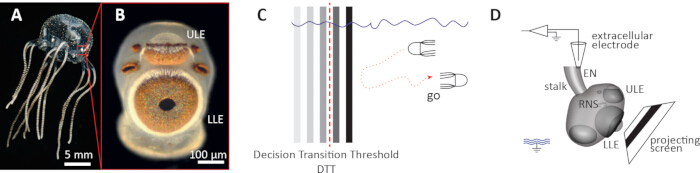
Figuur 1: Overzicht van de geïsoleerde rhopalium-preparatie van Tripedalia cystophora voor extracellulaire elektrofysiologische registratie. (A) Volwassen T. cystophora medusa. Schaalbalk: 5 mm. Het rode kader geeft de positie van één rhopalium aan op de rand van de klok. (B) Detailopname van een geïsoleerd rhopalium. Het bovenste lens-oog (ULE) en het onderste lens-oog (LLE) zijn beeldvormende ogen. Schaalbalk: 100 µm. Afbeelding door Dan-Eric Nilsson, gereproduceerd met toestemming. (C) Schematische weergave van het obstakelvermijdingsgedrag (OAB). Onder de drempelwaarde voor besluitvorming (DTT, rode stippellijn) blijft het dier naar het obstakel zwemmen (no go). Boven de DTT wordt het obstakelvermijdingsgedrag geïnitieerd (go). (D) Schema van de elektrofysiologische preparatie van het geïsoleerde rhopalium. Het rhopalium is gepositioneerd tegenover het schuine projectiescherm. De extracellulaire elektrode registreert swim-pacemakersignalen vanuit de epidermale steelzenuw (EN). RNS: rhopaliaal zenuwstelsel; ULE: bovenste lens-oog; LLE: onderste lens-oog; EN: epidermale steelzenuw. Het aardingssymbool geeft de referentie-elektrode van het bad aan. Klik hier om een grotere versie van deze figuur te bekijken.
Het neurale substraat dat deze visuele verwerking medieert, is het RNS, dat ongeveer 1000 neuronen per rhopalium omvat17. Ondanks dit beperkte aantal neuronen is het RNS architectonisch complex. Immunohistochemisch bewijs suggereert dat het is georganiseerd in afzonderlijke clusters van neuronen die verschillende neuropeptideprofielen tot expressie brengen18, wat consistent is met een gecompartimenteerde verwerkingsarchitectuur. Er wordt gesuggereerd dat visuele informatie wordt verwerkt via ondergeschikte oscillatoire clusters (subOCs), waarvan elk geassocieerd is met een specifiek oog op het rhopalium, die convergeren naar een terminaal oscillatoir cluster (trmOC) — waarvan wordt aangenomen dat dit overeenkomt met de populatie pacemakercellen die het motorische outputsignaal genereert dat de samentrekkingen van de klok controleert3. Wij stellen voor dat het trmOC verwerkte sensorische informatie van de subOCs integreert en het zwempacemakersignaal genereert dat de gedragsmatige motorische output aanstuurt, en dat synchronisatie tussen de subOCs en het trmOC ten grondslag ligt aan de transformatie van visuele input naar gedragsmatige controle-output3 (Figuur 2).
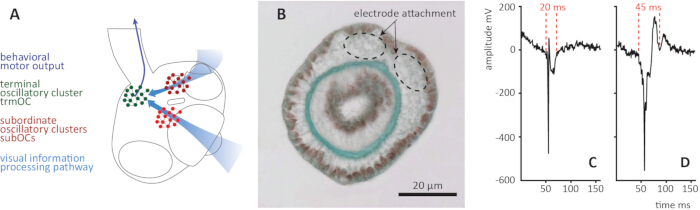
Figuur 2: Oorsprong van het neurale circuit en elektrofysiologische identificatie van het zwem-pacemakersignaal in Tripedalia cystophora. (A) Schema van het rhopaliale zenuwstelsel. Visuele informatie wordt verwerkt via ondergeschikte oscillerende clusters (subOCs, rood) die geassocieerd zijn met de individuele ogen, en convergeert op het terminale oscillerende cluster (trmOC, groen). Er wordt voorgesteld dat de trmOC de verwerkte sensorische informatie van de subOCs integreert en het zwem-pacemakersignaal genereert dat de gedragsmatige motorische output aanstuurt. Lichtblauwe pijlen geven het pad van de visuele informatieverwerking aan; de donkerblauwe pijl geeft de gedragsmatige motorische output aan. (B) TEM-micrograaf van het doorsneden oppervlak van de epidermale steel. Gestippelde cirkels geven de twee aanhechtingspunten van de gevorkte zenuw van de epidermale steel op het adorale oppervlak van de steel aan, overeenkomend met de plaatsen van de registratie-elektroden. (C) Actiepotentiaal-achtig signaal. De golfvorm wordt gekenmerkt door een scherpe, smalle afbuiging met een duur van ongeveer 20 ms (aangegeven door rode stippellijnen). (D) Zwem-pacemakersignaal afkomstig uit de trmOC. De golfvorm is breder, met een karakteristieke duur van ongeveer 45 ms (aangegeven door rode stippellijnen), en vertoont een samengestelde morfologie die de opgetelde activiteit van meerdere trmOC-neuronen weerspiegelt. Hoewel de signalamplitudes vergelijkbaar zijn tussen de twee signaaltypes, zijn de duur en morfologie van de golfvorm de betrouwbare onderscheidende criteria voor downstream-analyse. Alle elektrofysiologische waarden zijn na versterking (×1000). Gewijzigd met toestemming van Bielecki et al.24. Klik hier om een grotere versie van deze figuur te bekijken.
Deze architectuur biedt een uitzonderlijke experimentele mogelijkheid. Het zwempacemakersignaal dat door de trmOC wordt gegenereerd, stuurt bellcontracties aan in een strikte één-op-één relatie19 en kan extracellulair worden geregistreerd vanuit de epidermale stelenzen van een geïsoleerd rhopalium13,20. Dit betekent dat visueel opgewekte motorische commando's, en bijgevolg visueel gestuurde gedragsresponsen, kunnen worden gemonitord met elektrofysiologische methoden in een preparaat waarvan de motorische effectoren zelf volledig zijn verwijderd14. Het geïsoleerde rhopalium neemt hiermee een methodologische tussenpositie in die in andere systemen moeilijk te bereiken is: het biedt de experimentele controle van een gereduceerd preparaat, inclusief nauwkeurige specificatie van spatio-temporele visuele stimuli, terwijl een directe, kwantitatieve readout van gedragsrelevante neurale output behouden blijft. Onder ongestoorde omstandigheden treden pacemakersignalen op met een frequentie van 0,5–1 Hz; visueel opgewekte responsen voor het vermijden van obstakels worden gekenmerkt door stijgingen naar 2–3 Hz, wat een duidelijk signaalvenster voor analyse biedt14 (Figuur 1D).
Deze combinatie van eigenschappen maakt de geïsoleerde rhopalium-preparaat van T. cystophora zeer geschikt voor onderzoek op systeemniveau naar visuele verwerking en sensorimotorische integratie. Dit preparaat is geschikt voor onderzoekers die visuele verwerking, sensorimotorische integratie of oscillatoire netwerkdynamiek willen bestuderen in een hanteerbaar zenuwstelsel met beeldvormende ogen en goed gekarakteriseerde, visueel gestuurde gedragingen4. Het vereist standaard electrofysiologische apparatuur, een aangepaste commerciële projector en een dissectiemicroscoop, en kan worden opgezet in een laboratorium zonder gespecialiseerde infrastructuur. Het associatieve mechano-visuele leerparadigma — de associatieve koppeling van gelijktijdige visuele en mechanosensorische stimulatie — dat eerder is beschreven voor dit preparaat14, kan worden geïmplementeerd als een uitbreiding van het hier beschreven basisregistratieprotocol.
Protocol
Voor deze studie was geen ethische goedkeuring voor dierproeven vereist. Cnidaria, waaronder Tripedalia cystophora, vallen buiten het bereik van Richtlijn 2010/63/EU betreffende de bescherming van dieren die voor wetenschappelijke doeleinden worden gebruikt, aangezien deze uitsluitend van toepassing is op cefalopoden en gewervelden. De in deze studie gebruikte dieren zijn verzameld uit mangrovekreken bij La Parguera, Puerto Rico, VS, dat geen partij is bij het Nagoya-protocol inzake toegang tot genetische hulpbronnen en de eerlijke en billijke verdeling van de voordelen die daaruit voortvloeien; daarom was er geen voorafgaande geïnformeerde toestemming of overeenkomst over toegang en winstdeling vereist. Tripedalia cystophora staat niet vermeld als bedreigd of beschermd onder CITES of enige toepasbare nationale natuurbeschermingswetgeving.
1. Opstelling van het podium en de signaalketen
OPMERKING: Alle hardwarecomponenten en hun verbindingen zijn weergegeven in Figuur 3. Raadpleeg Figuur 3 gedurende dit hele gedeelte. Alle stappen in dit gedeelte moeten zijn voltooid voordat het dier wordt gehanteerd. De registratiekamer is in dit stadium nog niet gevuld met zeewater.
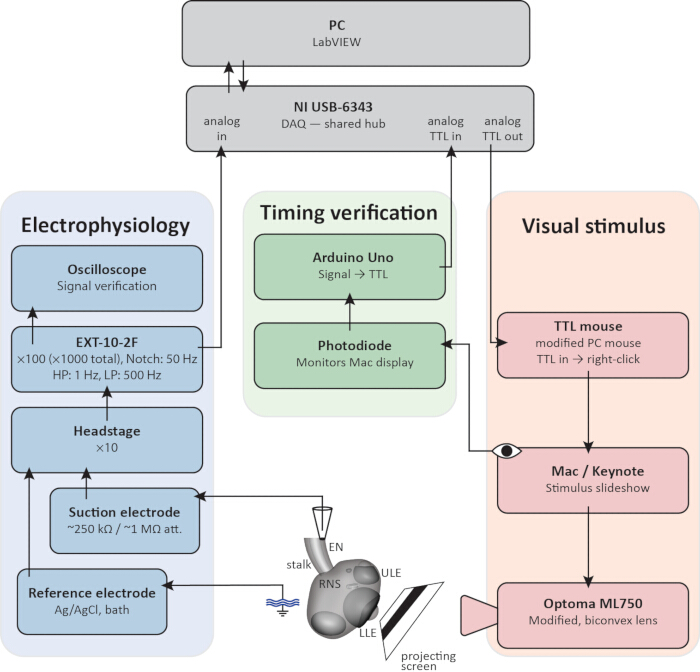
Figuur 3: Aansluitschema voor de extracellulaire elektrofysiologische preparatie van het geïsoleerde rhopalium. De PC waarop VI draait en de DAQ (boven, grijs) dienen als gezamenlijk integratiecentrum voor alle drie de signaalketens. Elektrofysiologische keten (blauw): Zwempacemaker-signalen worden geregistreerd vanuit de epidermale steelzenuw (EN) via een zuigelektrode (~250 kΩ vrije tip, ~1 MΩ bevestigd) en een in het bad geplaatste Ag/AgCl referentie-pelletelektrode, versterkt door de EXT-10-2F headstage (×10) en hoofdversterker (×100, totaal ×1000) met banddoorlaatfilter (HP: 1 Hz, LP: 500 Hz) en 50/60 Hz notch-filtering, gemonitord op de oscilloscoop en vastgelegd door de DAQ. Visuele stimulusketen (rood): Een DAQ TTL-puls schuift de stimulus-diavoorstelling vooruit via een gemodificeerde PC-muis (TTL-muis), die de DLP-projector (gemodificeerd, biconvexe lens) aanstuurt om de stimulus te projecteren op de schuine schermwand van de registratiekamer voor het onderste lens-oog (LLE). Timing-verificatieketen (groen): Een fotodiode monitort het zwart-witte indicatievierkant op het computerscherm dat bij het begin van de stimulus van wit naar zwart schakelt en bij het einde terugkeert naar wit; een Arduino Uno zet dit signaal om in een TTL-puls die door de DAQ wordt geregistreerd als het geverifieerde stimulusvenster. RNS: rhopaliaal zenuwstelsel; ULE: bovenste lens-oog; LLE: onderste lens-oog; EN: epidermale steelzenuw. Alle amplitudewaarden zijn na versterking (×1000). Klik hier om een grotere versie van deze figuur te bekijken.
- Constructie van de registratiekamer
- Ontwerp of print met een 3D-printer een registratiekamer met voldoende interne afmetingen om het preparaat, de punt van de vasthoudmicropipet en de punt van de registratie-elektrode te kunnen accommoderen.
OPMERKING: De functioneel kritische ontwerpeigenschappen zijn de dekglasrand, die het rhopalium aan de rand van het dekglas positioneert op 2 mm van het projectiescherm, en de afmetingen van het scherm (16 mm × 12 mm, geplaatst onder een hoek van 60°), die samen de hoekomvang van de visuele stimulus bepalen bij het oog met de lagere lens. De hier beschreven kamer heeft een basisvoetafdruk van 30 mm × 30 mm en een wanddikte van ongeveer 5 mm. Technische tekeningen zijn opgenomen in Figuur 4. - Plaats het Roth 20 mm × 26 mm hemocytometer-dekglas op de dekglassteunen van de registratiekamer. Het dekglas blijft door negatief drijfvermogen op zijn plaats rusten en vereist geen adhesieve fixatie.
- Bevestig de registratiekamer op de microscooptafel met behulp van de M6-doorgangen. Een x-y-z translatieplatform wordt aanbevolen, aangezien dit een nauwkeurige uitlijning van het geprojecteerde beeld op de projectiewand van de registratiekamer vergemakkelijkt.
- Verbind de inlaat- en uitlaatpoorten van de doorstroomkanalen van de registratiekamer (Figuur 4A) in een temperatuurgecontroleerd waterbad met circulerend water op 28 °C.
OPMERKING: De temperatuur van de registratiekamer moet worden gehandhaafd tussen 28–30 °C gedurende het gehele experiment.
- Ontwerp of print met een 3D-printer een registratiekamer met voldoende interne afmetingen om het preparaat, de punt van de vasthoudmicropipet en de punt van de registratie-elektrode te kunnen accommoderen.
- Optische configuratie (Figuur 3, visuele stimulusketen)
WAARSCHUWING: Kijk niet rechtstreeks in de output van de projector, met name voordat de neutraaldichtheidsfilters zijn geïnstalleerd (Sectie 4). Het verwijderen van het lenssysteem van de fabrikant heft de ingebouwde lichtdemping op en kan oogletsel veroorzaken.- Verwijder het lenssysteem van de fabrikant uit de projector.
- Plaats een enkele biconcave lens (f = 30 mm) voor de uitgangsapertuur van de projector om het geprojecteerde beeld op de projectieschermwand van de opnamekamer te focussen.
- Lijn de projector zodanig uit dat het geprojecteerde beeld scherp is op de projectiewand van de opnamekamer en de afmetingen van het scherm (16 mm × 12 mm) vult.
OPMERKING: Neutrale dichtheidsfilters worden in dit stadium niet geplaatst. De juiste filtersterkte wordt empirisch bepaald tijdens de biologische kalibratie in sectie 4.
- Assemblage van de signaalketen (Figuur 3, elektrofysiologie en timing-verificatieketens)
- Verbind de電rodehouder met de headstage-arm die bij de EXT-10-2F-versterker wordt geleverd en bevestig de headstage-arm in een MM33-micromanipulator.
- Verbind de headstage met de hoofdversterker. De versterking van de headstage is ×10. Stel de versterking van de hoofdversterker in op ×100, wat resulteert in een totale versterking van ×1000.
- Verbind de uitgang van de versterker met een analoog ingangskanaal van een analoog-digitaalomvormer (DAQ).
- Sluit de DAQ via USB aan op de pc waarop LabVIEW (versie 2018 of vergelijkbaar) is geïnstalleerd.
- Verbind de TTL-uitgang van de Arduino Uno met een specifiek analoog ingangskanaal van de DAQ.
- Plaats de fotodiode boven het zwart-witte indicatievierkant op het computerscherm (stap 1.4.2). Verbind de positieve terminal van de fotodiode met de analoge ingangspin A0 van de Arduino Uno en de negatieve terminal met de aarde. De Arduino-sketch waarin de monitoring van de fotodiode en de TTL-uitgangsdrempellogica zijn geïmplementeerd, is bijgevoegd als aanvullend materiaal (Aanvullend bestand 1).
- Ontwerp van de stimulusgeometrie (Figuur 3, visuele stimulusketen)
- Ontwerp de visuele stimulus in de presentatiesoftware als een bewegende verticale grijze balk op een witte achtergrond, ter nabootsing van een mangrove-stutwortel als obstakel. Stel de achtergrond in op maximaal wit.
OPMERKING: Het grijzniveau van de balk ten opzichte van de witte achtergrond bepaalt het contrast van de stimulus en wordt vastgesteld tijdens de karakterisering van de bestraalsterkte in sectie 4. De balk moet een hoek onderspannen van 30° van de visuele hoek van het onderste lens-oog (gemeten in het centrum van het gezichtsveld) en beweeg op 10° s-1 over de volledige breedte van het gezichtsveld, waarbij op alle momenten binnen het gezichtsveld wordt gebleven. De visuele hoek van een geprojecteerd obstakel kan worden bepaald door:
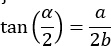
waarbij α de visuele hoek is, a de breedte van het beeldkenmerk en b de afstand van het onderste lens-oog tot het scherm. De beweging van de balk is geïmplementeerd als een enkele continue objectanimatie (bijv. de "Move"-opbouw van Keynote) die is toegepast op het balkobject binnen één dia, in plaats van als een reeks afzonderlijke dia's. Een representatief stimulusbestand waarin deze animatie is geïmplementeerd, is bijgevoegd als aanvullend materiaal (Aanvullend bestand 2Omdat de staafbreedte en de snelheid zijn gespecificeerd in visuele hoek in plaats van in fysieke eenheden, moeten beide worden omgezet naar millimeters en mm/s met behulp van de bovenstaande vergelijking, op basis van de specifieke werkafstand en de schermafmetingen van de registratiekamer, voordat ze als objectgrootte en duur van de animatie in de presentatiesoftware worden ingevoerd. - Plaats een klein zwart-wit indicatorvierkantje in een hoek van de dia dat van wit naar zwart wisselt gelijktijdig met het begin van de beweging van de balk en terugkeert naar wit bij het beëindigen van de stimulus. Monitor dit vierkantje op het computerscherm met behulp van de fotodiode voor de verificatie van de timing van de stimulus in stap 3.3.
OPMERKING: Het zwart-wit indicatorvierkant verschijnt noodzakelijkerwijs binnen het geprojecteerde beeld op het scherm van de registratiekamer, aangezien het deel uit moet maken van de dia om tijdens de presentatie op het computerscherm zichtbaar te zijn. Het vierkant is echter zo gedimensioneerd dat het op het computerscherm enkel het receptieve gebied van de fotodiode vult. Wanneer het op het kamerscherm wordt geprojecteerd, is het voldoende klein om niet als een afzonderlijk visueel kenmerk te worden waargenomen door het oog met de onderste lens, en is de bijdrage aan de totale luminantie van het scherm verwaarloosbaar, waardoor er geen licht-AAN/UIT-responsen worden uitgelokt.4,13,20. - Schakel de dia's van de presentatiesoftware door met een automatische of handmatige trigger.
- Optie A (geautomatiseerd): Constructeer een transistor-transistor-logic (TTL)-muis door een standaard pc-muis zodanig aan te passen dat een korte 5 V TTL-puls vanuit de DAQ-uitgang een rechtermuisklik-signaal vervangt. Sluit de TTL-muis via USB aan op de presentatiecomputer. Configureer de presentatiesoftware zodanig dat dia's worden gewisseld bij een rechtermuisklik-input.
- Optie B (handmatig): Activeer handmatig het doorgaan naar de volgende dia op het gewenste moment van stimulusaanvang. Omdat het Arduino-geverifieerde stimulusvenster (kanaal 3), en niet het triggersignaal zelf, wordt gebruikt als het definitieve timingrecord voor analyse (stap 6.2.1), brengt handmatige triggering de timingnauwkeurigheid niet in gevaar, hoewel het een nauwkeurige timing van de operator vereist tijdens de acquisitie en minder praktisch is dan de geautomatiseerde optie.
- Ontwerp de visuele stimulus in de presentatiesoftware als een bewegende verticale grijze balk op een witte achtergrond, ter nabootsing van een mangrove-stutwortel als obstakel. Stel de achtergrond in op maximaal wit.
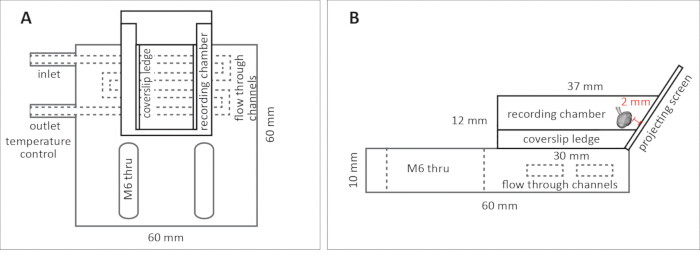
Figuur 4: Registratiekamer voor de geïsoleerde rhopalium-preparaat. (A) Schematisch bovenaanzicht. De registratiekamer wordt geflankeerd door doorstroomkanalen voor temperatuurregeling via een watermantel, met aangegeven in- en uitlaatpoorten (OD 4,2 mm, ID 2,5 mm). De dekglassteunen lopen longitudinaal langs beide binnenwanden van de kamer en ondersteunen het hemocytometer-dekglas op halve hoogte van de kamer. M6 doorvoergaatjes dienen als bevestigingspunten om de kamer aan de microscooptafel te bevestigen. Totale afmetingen: 60 mm × 60 mm. (B) Schematisch zijaanzicht met afmetingen. De registratiekamer heeft een interne hoogte van 12 mm en een bovenbreedte van 37 mm. Eén wand van de kamer vormt het projectiescherm, dat onder een hoek van 60° ten opzichte van de verticale as staat om uit te lijnen met de optische as van het onderste lens-oog. De dekglassteun positioneert het rhopalium aan de rand van het dekglas die naar het projectiescherm is gericht. De getoonde werkafstand van 2 mm weerspiegelt de specifieke configuratie van kamer, scherm en projector die in dit protocol wordt beschreven; lezers die dit ontwerp aanpassen aan andere hardware, dienen een geschikte werkafstand voor hun eigen opstelling te herberekenen met behulp van de vergelijking in stap 1.4.1. Doorstroomkanalen voor temperatuurregeling lopen door de basis van de registratiekamer en komen niet in contact met het preparaat. Klik hier om een grotere versie van deze figuur te bekijken.
2. Fabricage van de elektroden
OPMERKING: Extracellulaire zuigelektroden bestaan uit glazen capillaire buisjes met taps toelopende uiteinden die zijn uitgetrokken om een opening te creëren die geschikt is voor zuigadhesie en het registreren van elektrische potentialen. Het glazen capillair dient als elektrische isolatie, waardoor alleen potentialen aan de punt worden geregistreerd. Een zilverdraad die in het capillair is ingebracht, maakt verbinding met de versterker. Deze configuratie maakt multi-unit registraties mogelijk, waarbij elektrische potentialen van groepen pacemakercellen aan de elektrodepunt worden vastgelegd, gemeten ten opzichte van een in het bad geplaatseerde referentie-elektrode. Elektroden moeten op de dag van gebruik worden gefabriceerd, voorafgaand aan de registratiesessie. Opgeslagen elektroden zijn gevoelig voor occlusie van de punt, waardoor zeewater niet in het capillair kan worden gezogen en de elektrode niet functioneel is. Uitgetrokken glazen capillairen hebben scherpe, fragiele punten. Ga voorzichtig om tijdens de fabricage om steekletsel te voorkomen, en gooi gebroken, afgekeurde of gebruikte capillairen in een aangewezen container voor scherpe voorwerpen.
- Het uitrekken van de glazen capillaire buis
- Plaats een borosilicaat glazen capillaire buis (1,16 mm ID × 2,00 mm OD × 80 mm L) in de micropipet-uitrekker.
- Voer het volgende uitrekprogramma uit: Lijn 1 (×1): hitte 535, trek 0, snelheid 12, tijd 200, druk 600, ramp 540. Lijnen 2–4 (×3): hitte 532, trek 0, snelheid 12, tijd 100.
OPMERKING: Deze parameters zijn specifiek voor het gebruikte instrument, het glas en het filament en kunnen aanpassing vereisen op een ander apparaat of na slijtage van het filament; beschouw ze als een startpunt en niet als een vaste specificatie. - Verwijder de uitgerekte elektrode voorzichtig en bewaar deze met de punt omhoog om mechanische beschadiging te voorkomen.
- Het polijsten van de elektrodepunt
- Polijst de punt om een glad, vacuümdicht oppervlak te creëren dat loodrecht op de capillaire as staat. Raadpleeg de twee onderstaande opties; Optie A (microforge) wordt aanbevolen.
- Optie A: Polijsten met een microforge (aanbevolen)
- Monteer de uitgerekte elektrode in een microforge.
- Positioneer de punt bij een vergroting van 600× (40× objectief, 15× oculair) nabij het verwarmingsfilament.
- Verwarm en polijst de punt totdat de opening een weerstand van ongeveer 250 kΩ meet (overeenkomend met ~1 MΩ bij contact met weefsel). Bij een vergroting van 600× komt dit overeen met ongeveer drie inkepingen op de schaal van het oculair-reticle.
OPMERKING: Om de elektrodeweerstand te meten, sluit u een multimeter aan tussen de BNC-kern (verbonden met de zilverdraad van de elektrode) en de badreferentie-elektrode (Ag/AgCl-pellet), zodra de elektrode is gevuld met zeewater. Weerstandsmeting is niet vereist voor standaard visueel geëvoceerde opnames, waarbij signaalkwaliteit het primaire criterium is voor de geschiktheid van de elektrode (stap 6.1.5); dit wordt wel noodzakelijk wanneer deze preparatie wordt gebruikt voor het associatieve leerparadigma waarbij berekende stroomtoediening vereist is, wat buiten de reikwijdte van dit protocol valt14. - Laat de elektrode volledig afkoelen voordat u deze uit de microforge verwijdert.
- Optie B: Handmatig polijsten zonder microforge
WAARSCHUWING: Deze stap maakt gebruik van een open vlam (ethanolbrander). Houd brandbare materialen uit de buurt van de vlam en volg de standaard laboratoriumvoorschriften voor open vlammen.- Houd de uitgerekte capillaire punt kort in de vlam van een ethanolbrander totdat het glas smelt en de punt als een fijne druppel afsluit.
- Laat de afgesloten punt volledig afkoelen.
- Plaats een druppel gedeïoniseerd water op een vel fijn schuurpapier (korrel 1200) en houd de capillair loodrecht op het papieroppervlak.
- Schuur de punt met kleine cirkelvormige bewegingen, waarbij u afwisselend met de klok mee en tegen de klok in beweegt.
- Ga voorzichtig door met schuren totdat er door capillaire werking een kleine hoeveelheid water met glasresten in de punt wordt getrokken.
- Bevestig een rubberen slang aan het tegenovergestelde uiteinde van de capillair en verbind deze met een spuit.
- Oefen een lichte zuiging uit om gedeïoniseerd water door de punt te trekken en zo glasresten weg te spoelen.
- Als de resten niet verdwijnen, schuur dan nog kort voorzichtig en herhaal de spoelstap.
OPMERKING: De beoogde stroomsnelheid door de voltooide punt is ongeveer 1 cm waterkolom per 10 s bij voorzichtig toegepaste zuiging. Het succes van de puntfabricage wordt bepaald door de opnameuitkomst (laag-ruis, hoog-amplitude signaal), niet door het uiterlijk van de punt. Ongeveer 40%–50% van de gefabriceerde elektroden bij beide polijstopties levert dergelijke opnames op, hoewel de beperkende factor per optie verschilt. Bij polijsten met een microforge (Optie A) is de oorzaak van falen meestal een ongelijkmatige poriegeometrie die ontstond tijdens de uitrekstap (stap 2.1), wat door daaropvolgende warmtepolijsting niet volledig kan worden gecorrigeerd. Bij handmatig polijsten (Optie B) hangt succes primair af van de vaardigheid van de operator; de meest voorkomende fout is een te grote porie door overmatig schuren. Een gladde, correct gevormde ronde porie verhoogt de kans op een kwalitatief hoogwaardige opname aanzienlijk, maar garandeert deze niet — de functionele uitkomst is het enige criterium dat er uiteindelijk toe doet.
- Het assembleren van de elektrode
- Plaats de gepolijste capillaire buis in de elektrodehouders, waarbij u erop let dat de Ag/AgCl (zilver/zilverchloride) draad is uitgerekt en zonder knikken in de glazen capillair zit, en monteer deze in de headstage-arm die bij de EXT-10-2F versterker is geleverd. Bevestig de headstage-arm in de MM33 micromanipulator.
OPMERKING: Als de zilverdraad niet is gechlorideerd, chlorideer deze dan elektrochemisch door zowel de zilverdraad van de elektrode als een aparte massieve zilverelektrode onder te dompelen in een 2 M KCl-oplossing, verbonden via geïsoleerde draden met een 12 V DC-bron. Pas de stroom toe in intervallen van ongeveer 2 min en inspecteer de draad visueel tussen de rondes door; de draad is voldoende gechlorideerd zodra deze zichtbaar is donker geworden, meestal binnen in totaal 5 min. Spoel grondig na met gedeïoniseerd water na het chlorideren. Een niet-gechlorideerde draad kan een grote en onstabiele DC-offset introduceren.
WAARSCHUWING: Elektrolytisch chlorideren in KCl-oplossing genereert chloor- en waterstofgas. Voer dit uit in een geventileerde ruimte. Voer gebruikte KCl-chlorideeroplossing af in overeenstemming met de institutionele richtlijnen voor gevaarlijk afval. - Vul de elektrode vlak voor de opname door zeewater rechtstreeks uit de gevulde opnamekamer in de capillair te trekken totdat de interne oplossing halverwege de zilverdraad reikt. Zie stap 3.1 voor de vullingsprocedure.
OPMERKING: Holding-micropipetten vereisen niet de optische of elektrische specificaties van opname-elektroden. Elektroden die tijdens de fabricage (stap 2.2) zijn afgekeurd vanwege een te grote puntdiameter (weerstand onder 250 kΩ) of een decentrische puntgeometrie zijn geschikt voor dit doel en moeten worden bewaard. Het fabriceren van speciale holding-micropipetten is niet nodig.
- Plaats de gepolijste capillaire buis in de elektrodehouders, waarbij u erop let dat de Ag/AgCl (zilver/zilverchloride) draad is uitgerekt en zonder knikken in de glazen capillair zit, en monteer deze in de headstage-arm die bij de EXT-10-2F versterker is geleverd. Bevestig de headstage-arm in de MM33 micromanipulator.
3. Systeemvalidatie
In deze sectie wordt geverifieerd dat het volledige registratiesysteem — elektrode, signaalketen, stimulusafgifte en tijdverificatie — correct functioneert voordat de experimentele preparatie wordt geïntroduceerd. De volledige signaalketen is weergegeven in Figuur 3. Controleer of alle verbindingen correct zijn gemaakt voordat u verdergaat.
- Vullen van de kamer en voorbereiding van de elektroden
- Vul de registratiekamer met 0,20 µm gefilterd zeewater uit het cultuurtank. Dit waarborgt de continuïteit van de chemische samenstelling tussen de culturomgeving en de registratiekamer, waardoor blootstelling van het rhopalium aan vreemde verbindingen of veranderingen in de waterchemie, die de pacemakeractiviteit of de levensvatbaarheid van het preparaat kunnen beïnvloeden, wordt voorkomen.
- Vul de registratie-zuigelektrode door zeewater direct uit de registratiekamer in de capillair te trekken totdat de interne oplossing halverwege de zilverdraad reikt. Vul de holding-micropipet met voldoende zeewater uit de registratiekamer om zuigadhesie aan het kristal mogelijk te maken.
- Plaats een Ag/AgCl (zilver/zilverchloride) gesinterde pellet-elektrode in het registratiebad en verbind deze met de referentie-ingang van de headstage.
- Aarding en ruisverificatie
WAARSCHUWING: Deze opstelling maakt gebruik van elektrische apparatuur in nauwe nabijheid van zeewater. Houd alle elektrische verbindingen en apparatuur uit de buurt van de kamer en eventuele morsingen, en volg de institutionele elektrische veiligheidspraktijken voor werk in natte omgevingen.- Aard alle instrumenten op één gemeenschappelijk aardpunt (ster-aardingsconfiguratie) om aardlussen te voorkomen.
- Houd het signaal op de oscilloscoop in de gaten. Verifieer dat de basislijn schoon en ruisvrij is voordat u verdergaat.
OPMERKING: Faraday-kooien worden in ons laboratorium over het algemeen niet gebruikt voor extracellulaire registraties, aangezien strikte ster-aarding consistent effectiever blijkt bij het elimineren van elektrische (50/60 Hz) ruis dan fysieke afscherming.
- Verificatieketen van de timing
- Start het LabVIEW virtuele instrument (VI) (meegeleverd als aanvullend materiaal, Supplementary File 3). Voer het VI uit tijdens de systeemvalidatie. Dit stuurt de TTL-puls naar de TTL-muis om de stimulus-opbouw te triggeren en genereert een .txt-outputbestand waarmee kan worden geverifieerd dat alle kanalen — electrofysiologisch signaal, LabVIEW TTL en Arduino TTL — correct worden geregistreerd voordat het experimentele preparaat wordt geïntroduceerd.
OPMERKING: De vertraging tussen het door LabVIEW gelogde TTL-commando en het door Arduino geverifieerde begin van de stimulus varieert onvoorspelbaar tussen registraties en wordt in dit stadium niet opgelost; het wordt in plaats daarvan individueel bepaald en gecorrigeerd in elke registratie tijdens de analyse (stap 7.2.1). - Verifieer dat de TTL-puls van de DAQ de stimulus-opbouw correct triggert en dat de visuele stimulus volgens ontwerp op het projectiescherm wordt geprojecteerd.
- Verifieer dat de Arduino Uno de verandering in het zwart-witte indicatievierkant op het computerscherm detecteert en een TTL-puls naar de DAQ stuurt.
OPMERKING: De Arduino Uno bemonst de fotodiodespanning via analogRead(A0). Wanneer de bemonsterde waarde onder een empirisch bepaalde drempelwaarde zakt (61 van het 0–1023 analogRead-bereik in deze opstelling), wordt digitale outputpin 5 ingesteld op 5 V (TTL high); wanneer de waarde weer boven de drempel komt, keert de output terug naar 0 V. Deze drempelwaarde is afhankelijk van de opstelling en moet opnieuw worden gekalibreerd voor elk scherm en elke configuratie van de omgevingsverlichting. - Bevestig dat de stimulus-window TTL van de Arduino Uno correct is geregistreerd in het .txt-bestand dat door het LabVIEW VI is gegenereerd, samen met het electrofysiologische kanaal en het digitale TTL-kanaal van het VI.
OPMERKING: Het fotodiodesignaal wordt niet direct door de DAQ geregistreerd, aangezien de ruwe fotodiode-output te ruisgevoelig is voor betrouwbare stimulusdetectie bij de DAQ-ingang. Conversie naar een schone TTL-puls door de Arduino Uno garandeert een betrouwbaar timingsignaal met weinig ruis. De Arduino-sketch die de fotodiodemonitoring en TTL-output implementeert, is beschikbaar als aanvullend materiaal (Supplementary File 1). De 1 kHz verversingssnelheid van de Arduino komt overeen met de bemonsteringssnelheid van de DAQ, waardoor er geen timinginformatie verloren gaat. - Zodra alle kanalen zijn geverifieerd, leegt u de registratiekamer en verwijdert u de elektrode uit de kamer ter voorbereiding op Sectie 4.
- Start het LabVIEW virtuele instrument (VI) (meegeleverd als aanvullend materiaal, Supplementary File 3). Voer het VI uit tijdens de systeemvalidatie. Dit stuurt de TTL-puls naar de TTL-muis om de stimulus-opbouw te triggeren en genereert een .txt-outputbestand waarmee kan worden geverifieerd dat alle kanalen — electrofysiologisch signaal, LabVIEW TTL en Arduino TTL — correct worden geregistreerd voordat het experimentele preparaat wordt geïntroduceerd.
4. Lichtkalibratie en contrastbepaling
OPMERKING: Deze sectie stelt de juiste optische configuratie vast voor visuele stimulatie van het onderste lens-oog en bepaalt de irradiantie-waarden die nodig zijn voor contrastberekeningen. Een opofferingsrhopalium wordt gebruikt voor de biologische kalibratiestap. De irradiantie-karakterisering wordt uitgevoerd zonder enige preparatie in de kamer. Deze sectie is tijdrovend. Biologische kalibratie, irradiantie-karakterisering over alle grijswaarden en contrastberekeningen kunnen een aparte sessie vereisen voorafgaand aan de opnamedag. Het rhopalium dat voor biologische kalibratie is gebruikt, moet na deze sectie worden weggegooid en kan niet worden gebruikt voor opnames.
- Biologische kalibratie
- Vul de opnamekamer met 0,20 µm gefilterd zeewater uit het kweekreservoir.
- Isoleer een rhopalium en breng dit over naar de opnamekamer volgens de procedure beschreven in sectie 5.
- Positioneer het rhopalium op de rand van het dekglas, gericht naar het projectiescherm, met behulp van de klem-micropipet (Figuur 1D).
OPMERKING: Het positioneren van het rhopalium op de rand van het dekglas in plaats van op het oppervlak van het dekglas dient twee doelen: ten eerste kan de rand van het dekglas op een vaste, reproduceerbare afstand van het projectiescherm worden geplaatst, waardoor een consistente werkafstand voor alle opnames wordt gegarandeerd; ten tweede hoeft het onderste lensoog niet door het glazen dekglas heen te kijken om het scherm te zien, waardoor hoekvervorming van de visuele stimulus wordt vermeden. De afstand van de rand van het dekglas tot het projectiescherm bepaalt de hoeksubtensie van alle geprojecteerde stimuli bij het onderste lensoog en moet constant worden gehouden tijdens alle opnames. In de kamer die in dit protocol wordt beschreven, is deze afstand 2 mm. - Bevestig de opname-elektrode aan de epidermale steelzenuw volgens de procedure beschreven in stap 6.1.
- Presenteer een obstakel met maximaal contrast (c ≈ 1,0, zwarte balk op witte achtergrond) dat over de volledige breedte van het visuele veld beweegt en evalueer de respons van het pacemaker-signaal (Figuur 1C; Figuur 5).
OPMERKING: Fotometrische metingen bevestigden een maximaal bereikbaar contrast van c ≈ 0,99 tussen de helderste en donkerste grijswaarden van het gebruikte projectiesysteem, wat wijst op residuele luminantie in het zwartpunt van de projector in plaats van een beperking in het ontwerp van de stimulus; dit vormt de basis voor de benaderende notatie (c ≈ 1,0) die in dit protocol wordt gebruikt voor stimuli met maximaal contrast.
OPMERKING: (KRITISCH) Een bevredigende respons bestaat uit een robuuste toename van de frequentie van het pacemaker-signaal tot boven 2 Hz, die optreedt als een korte, tijdgebonden burst wanneer de voorzijde van het obstakel het centrum van het visuele veld bereikt, in plaats van een aanhoudende respons over de volledige presentatie van de stimulus, waarbij ongeveer 5–15 pacemaker-signalen tijdens deze burst voorkomen (Figuur 5B). De responssterkte, zowel in frequentie als in signaalaantal, schaalt met het contrast van de stimulus; de respons op een stimulus met maximaal contrast (c ≈ 1,0) moet daarom zo sterk mogelijk zijn, aangezien dit duidt op een correcte oriëntatie van het LLE, de elektrodebevestiging en de projectorcalibratie, en een adequaat dynamisch bereik garandeert om responsen bij lagere contrastniveaus te kunnen onderscheiden. Dit bevestigt dat de fotoreceptoren binnen hun dynamische bereik werken en niet verzadigd zijn door overmatige bestraling. Als er geen modulatie van de pacemakerfrequentie wordt waargenomen ondanks een gezonde preparatie die spontane pacemakeractiviteit vertoont bij 0,5–1 Hz, moet verzadiging van de fotoreceptoren door overmatige bestraling worden vermoed. Plaats een neutraal density filter (bijv. Thorlabs NE01A, optische dichtheid = 0,1, indien nodig) in de lensassemblage en herhaal de kalibratie. Verhoog de attenuatie stapsgewijs totdat een robuuste pacemakerfrequentierespons is verkregen. Alle daaropvolgende opnames moeten worden uitgevoerd met deze filterconfiguratie. - Zodra een bevredigende biologische respons is verkregen, noteer dan de configuratie van het neutraal density filter. Deze configuratie blijft vast voor alle volgende opnames met deze optische opstelling.
- Verwijder het rhopalium uit de opnamekamer en gooi het weg. Het rhopalium dat is gebruikt voor de biologische kalibratie kan niet worden gebruikt voor opnames vanwege de verstreken tijd tijdens de kalibratieprocedure.
- Karakterisering van de bestraling
- Leeg de opnamekamer en zorg dat het oppervlak van het projectiescherm droog is. Positioneer de spectrometervezel direct op en loodrecht op het oppervlak van het projectiescherm.
OPMERKING: De meeste optische vezels van spectrometers zijn niet waterbestendig. De kamer moet leeg zijn en het schermoppervlak droog voordat de vezel op het scherm wordt geplaatst. - Verlicht met de presentatiesoftware het projectiescherm uniform met elke te meten grijswaarde en registreer de bestraling (350–700 nm) met de spectrometer.
OPMERKING: Het wordt aanbevolen om van de maximale naar de minimale grijswaarde te werken (wit naar zwart), aangezien de spectrometer bij hoge bestralingsniveaus waarschijnlijk overbelicht raakt. Herkalibratie van de integratietijd kan op verschillende punten in het bereik van de grijswaarden nodig zijn om zowel overbelichting als onderbelichting te voorkomen. Dit proces over alle grijswaarden is tijdrovend en moet dienovereenkomstig worden gepland. - Corrigeer elke gemeten bestralingswaarde voor het absorptiespectrum van het 500 nm opsine van T. cystophora dat aanwezig is in het onderste lensoog21,22.
OPMERKING: Opsinecorrectie wordt uitgevoerd door de gemeten bestraling bij elke golflengte te vermenigvuldigen met de overeenkomstige receptantiecoëfficiënt uit het Govardovskii visueel pigment-sjabloon voor een λmax van 500 nm21, en vervolgens op te tellen over het gemeten golflengtebereik om één opsine-gecorrigeerde bestralingswaarde te verkrijgen. Deze berekening kan worden uitgevoerd in elke standaard spreadsheetsoftware zodra de ruwe spectrale bestralingsgegevens zijn verkregen. - Bereken het contrast van elke grijswaarde met behulp van de gecorrigeerde bestralingswaarden:

waarbij Iw de opsine-gecorrigeerde bestraling van de witte achtergrond is en Ig de opsine-gecorrigeerde bestraling van de grijze of zwarte balk is. Contrastwaarden variëren van 0 (balk ononderscheidbaar van achtergrond) tot 1 (maximaal contrast, zwarte balk op witte achtergrond). - Identificeer op basis van de berekende contrastwaarden de grijswaarden die overeenkomen met de contrastniveaus die vereist zijn voor het experimentele protocol. Werk de diavoorstelling van de presentatiesoftware bij met deze grijswaarden.
OPMERKING: Contrast is een verhouding van bestralingswaarden en is daarom ongevoelig voor uniforme veranderingen in de absolute lampoutput over alle grijswaarden. De karakterisering van de bestraling hoeft niet te worden herhaald tussen opnamesessies, mits de optische configuratie ongewijzigd blijft. Gebruikers worden echter geadviseerd de stabiliteit van de bestraling te verifiëren als er onverwachte veranderingen in de stimulusrespons tussen sessies worden waargenomen.
- Leeg de opnamekamer en zorg dat het oppervlak van het projectiescherm droog is. Positioneer de spectrometervezel direct op en loodrecht op het oppervlak van het projectiescherm.
<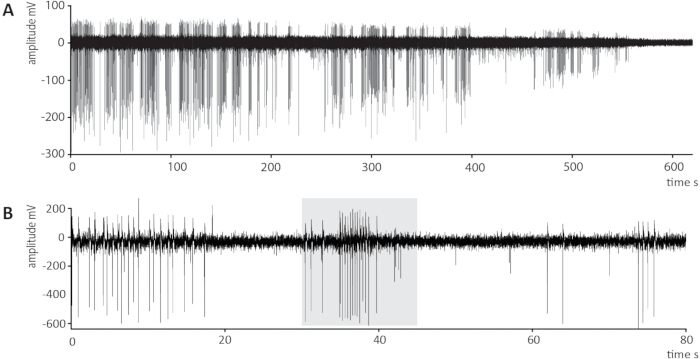
Figuur 5: Representatieve extracellulaire opname van swim-pacemakersignalen uit het geïsoleerde rhopalium van Tripedalia cystophora. (A) Voorbeeld van progressief verlies van de elektrodeafdichting tijdens een verlengde opnamesessie. De amplitude van het pacemakersignaal begint af te nemen bij ongeveer 200–250 s, wat duidt op een verslechterend elektrisch contact tussen de elektrodepunt en de epidermale stelenzenervus, en het signaal is volledig verloren rond ongeveer 580–600 s. Zowel de signaalamplitude als de achtergrondruis nemen parallel af, wat het karakteristieke kenmerk is van verlies van de afdichting. (B) Representatieve opname van een visueel opgewekte reactie op hindernisvermijding boven de DTT. Het grijs gearceerde gebied geeft het stimulusvenster aan, gedefinieerd door het Arduino TTL-signaal, waarin een verticale staafvormige hindernis met hoog contrast (c = 0,80) over de volledige breedte van het visuele veld van het oog van de onderste lens werd bewogen. De frequentie van het pacemakersignaal neemt aanzienlijk toe tijdens het stimulusvenster, wat consistent is met een visueel opgewekte reactie op hindernisvermijding, en keert terug naar de basislijnfrequentie na het beëindigen van de stimulus. Spontane pacemakersignalen die buiten het stimulusvenster voorkomen, worden verwacht en vormen geen visueel opgewekte reacties. Let op dat het verschil in de schaal van de y-as tussen de panelen de verschillende getoonde opnamekwaliteiten weerspiegelt en geen verschil in signaalsterkte impliceert; bij extracellulaire elektrofysiologie hangt de signaalamplitude af van de kwaliteit van de elektrodeafdichting en niet van de grootte van de fysiologische respons. Alle waarden zijn na versterking (×1000). Klik hier om een grotere versie van deze figuur te bekijken.
5. Isolatie en overdracht van het rhopalium
OPMERKING: Deze procedure wordt elke keer uitgevoerd wanneer een rhopalium nodig is: één keer met een offer-rhopalium voor de biologische kalibratie in Sectie 4, en vervolgens voor elk experimenteel rhopalium dat in Sectie 6 wordt gebruikt. Bij elke gelegenheid moet alle hardware volledig zijn geassembleerd en geverifieerd voordat het dier wordt gehanteerd. Het aantal experimentele rhopalia wordt bepaald door het experimentele ontwerp.
- Breng met een wegwerpplastic transferpipet, waarvan de punt is afgeknipt om een opening van ongeveer 8 mm diameter te verkrijgen, één enkel dier van de cultuurtank over naar een Petrischaal van 35 mm met 0,20 µm gefilterd zeewater uit de cultuurtank.
- Verwijder overtollig zeewater totdat het dier plat tegen de schaal ligt en immobiliseert, maar niet uitdroogt.
- Doorsnij met een fijne schaar (Vannasschaar, blad van 0,025 mm × 0,015 mm) de steel die het rhopalium met de klok verbindt op ongeveer twee derde van de steellengte, gemeten vanaf de rhopaliumbevestiging (d.w.z. distaal ten opzichte van het rhopalium). Vul de Petrischaal onmiddellijk na het doorsnijden opnieuw met 0,20 µm gefilterd zeewater uit de cultuurtank.
WAARSCHUWING: Vannasscharen zijn uiterst scherp. Ga voorzichtig om tijdens de dissectie om letsel te voorkomen.
OPMERKING: Het rhopalium kan na het doorsnijden terugtrekken in de rhopaliumnis. Het opnieuw vullen van de Petrischaal met gefilterd zeewater zal in de meeste gevallen het rhopalium lossen. Zo niet, gebruik dan een Pasteurpijp om het voorzichtig uit te spoelen.
Breng het geïsoleerde rhopalium met een Pasteurpijp (150 mm) over naar de elektrofysiologische registratiekamer op de microscooptafel. (CRUCIAL) Zorg ervoor dat het rhopalium tijdens en na de overdracht te allen tijde ondergedompeld blijft in zeewater. Blootstelling aan lucht zal de preparatie onherstelbaar beschadigen. - Breng het dier met een transferpipet terug naar de cultuurtank.
OPMERKING: Het verlies van één enkel rhopalium tast het normale gedrag van de dooskwallen niet significant aan; dieren die slechts één rhopalium behouden, blijven normaal voedingsgedrag en interactie met lichtstralen vertonen. Rhopalia regenereren bovendien tot volledige functionaliteit, inclusief herstel van pacemaker-signalering en normale fotoreceptorrespons, binnen twee weken na verwijdering23. Het dier kan in volgende sessies opnieuw worden gebruikt totdat er geen rhopalia meer over zijn. Zodra alle vier de rhopalia zijn verwijderd, is het dier niet langer in staat om zwempacemakersignalen of klokcontracties te genereren en wordt het humaan afgevoerd via de standaard laboratoriumafvoer, consistent met de afvoer van rhopaliumweefsel (stap 6.2.5).
6. Opname
- Positionering van het rhopalium en bevestiging van de elektrode
- Vul de opname-zuigelektrode door zeewater direct uit de opnamekamer in de capillaire te trekken totdat de interne oplossing halverwege de zilverdraad reikt. Vul de klem-micropipet met voldoende zeewater uit de opnamekamer om zuigadhesie aan het kristal mogelijk te maken.
- Plaats de klem-micropipet in een micromanipulator. Bevestig de punt van de klem-micropipet aan het calciumsulfaat (CaSO₄) kristal aan het distale uiteinde van het rhopalium door voorzichtig zuigkracht uit te oefenen via een aangesloten Luer-lock spuit. Het kristal dient als een robuust mechanisch ankerpunt zonder het neurale weefsel te beschadigen.
- Positioneer het rhopalium met de klem-micropipet op de rand van het dekglas, gericht op het projectiescherm (Figuur 1D).
OPMERKING: (CRUCIAAL) De afstand tussen het onderste lens-oog en het projectiescherm moet worden gemeten en geregistreerd, aangezien deze nodig is om de hoeksubtentie (acceptatiehoek) van geprojecteerde kenmerken van het beeld bij het onderste lens-oog te berekenen met behulp van:
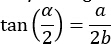
waarbij α de visuele hoek is, a de breedte van het beeldkenmerk is en b de afstand van het onderste lens-oog tot het scherm is. Bij een werkafstand van 2 mm beslaat een geprojecteerd beeld van 16 mm × 12 mm (b × h) ongeveer 150° horizontaal en 120° verticaal van het 170° circulaire visuele veld van het onderste lens-oog. De werkafstand moet constant worden gehouden voor alle opnames, aangezien elke afwijking de hoekberekeningen voor de gepresenteerde stimuli ongeldig maakt en directe vergelijking tussen opnames verhindert. - Terwijl de positie van het rhopalium met de klem-micropipet wordt behouden, wordt de opname-elektrode met een tweede micromanipulator naar het doorgesneden oppervlak van de steel bewogen.
OPMERKING: De epidermale steelzenuw loopt longitudinaal door de volledige lengte van de steel, van het aanhechtingspunt van het rhopalium tot de ringzenuw15. Op het doorgesneden oppervlak zijn de zenuwuiteinden van de vertakte epidermale steelzenuw blootgesteld en beschikbaar voor contact met de elektrode op het adorale oppervlak van de steel — de zijde die naar de lens-ogen is gericht (Figuur 2B). - Oefen voorzichtig zuigkracht uit via de Luer-lock spuit totdat er een stabiel signaal is vastgesteld.
OPMERKING: De zenuwuiteinden zijn niet altijd visueel te onderscheiden op het doorgesneden oppervlak. Positioneer de elektrodepunt boven het gebied waar de epidermale steelzenuw wordt verwacht op basis van anatomische kenmerken en oefen voorzichtig zuigkracht uit. Adequate bevestiging van de elektrode wordt aangegeven door de verschijning van grote, duidelijk opgeloste pacemaker-signalen met een consistente golfvorm bij de verwachte frequentie van 0,5–1 Hz (Figuur 5). Pacemaker-signalen worden onderscheiden van actiepotentiaal-achtige signalen op basis van de duur en morfologie van de golfvorm (Figuur 2C,D)13,20,24. De verschijning van stabiele pacemaker-signalen is het definitieve criterium voor correcte plaatsing van de elektrode, niet de visuele bevestiging van zenuwcontact. Als er geen signaal wordt verkregen, laat dan de zuigkracht los, positioneer de elektrodepunt lichtjes opnieuw op het doorgesneden oppervlak en probeer het opnieuw. Overmatige zuigkracht brengt het risico met zich mee dat de punt wordt geblokkeerd door weefselresten of dat het zenuwuiteinde mechanisch wordt beschadigd. Progressief verlies van signaalamplitude en achtergrondruis tijdens de opname is indicatief voor verlies van de elektrode-afdichting (Figuur 5A). - Laat het preparaat minimaal 10 min acclimatiseren na bevestiging van de elektrode voordat de opnames beginnen. Houd tijdens deze periode het projectiescherm verlicht met de witte achtergrond en de grijze balk stationair aan één zijde van het visuele veld, buiten het centrum.
OPMERKING: Bevestig vóór aanvang van de acclimatisatie de responsiviteit van het preparaat door een enkele stimulus met maximaal contrast (c ≈ 1,0) te presenteren; rhopalia die niet reageren, worden uitgesloten van de dataset. De acclimatisatieperiode stelt het preparaat in staat om te stabiliseren na de mechanische verstoring van de elektrodebevestiging. Het behouden van het witte scherm met een stationaire balk zorgt ervoor dat de fotoreceptoren licht-geadapteerd zijn aan de basiscondities die tijdens de visuele stimulatie zullen heersen, en dat de initiële baseline-frequentie van de pacemaker stabiel is voordat de eerste stimulus wordt gepresenteerd. Dit is een verder praktisch voordeel van het gebruik van presentatiesoftware voor stimuluscontrole. De scherminhoud tijdens de acclimatisatie en tussen opnames is direct zichtbaar en volledig controleerbaar zonder aanvullende programmering. - Zodra een stabiel pacemaker-signaal is vastgesteld, worden de banddoorlaatfilterinstellingen op de extracellulaire versterker geoptimaliseerd om de signaal-ruisverhouding te maximaliseren en de signaalamplitude en golfvormmorfologie te behouden, waarbij het effect op het oscilloscoopscherm wordt gemonitord. Gebruik de volgende startinstellingen: hoogdoorlaat 1 Hz en laagdoorlaat 500 Hz; schakel het 50/60 Hz notch-filter in (geïntegreerde EXT-10-2F add-on). Pas indien nodig aan op basis van het geobserveerde signaal.
OPMERKING: Het verhogen van de hoogdoorlaat-afsnijfrequentie boven 1 Hz zal de laagfrequente componenten van het pacemaker-signaal progressief attenueren, waardoor de amplitude afneemt en de signaaldetectie mogelijk in gevaar komt. De streefwaarde voor de signaalamplitude na versterking voor schone, gemakkelijk identificeerbare pacemaker-signalen is 400–600 mV, met een maximum van ongeveer 1 V.
- Gegevensverwerving
- Configureer de VI (geleverd als aanvullend materiaal, Aanvullend Bestand 3) om de volgende kanalen gelijktijdig via de DAQ te verwerven met een bemonsteringsfrequentie van 1 kHz:
Kanaal 1: Elektrofysiologisch signaal (versterkt en gefilterd pacemaker-signaal van EXT-10-2F)
Kanaal 2: Door LabVIEW gegenereerde analoge TTL-uitvoer naar de TTL-muis)
Kanaal 3: Arduino Uno analoge TTL-tijdstempel (registreert het geverifieerde stimulusvenster — begin gedefinieerd door TTL hoog, beëindiging gedefinieerd door TTL laag — zoals gedetecteerd door de fotodiode die het zwart-witte indicatievierkant op het computerscherm bewaakt).
OPMERKING: Kanaal 2 registreert de beoogde stimulus-leveringstijd en Kanaal 3 registreert het geverifieerde werkelijke stimulusvenster. Kanaal 3 moet worden gebruikt als het definitieve stimulus-timingrecord voor alle analyses. - Stel de opnameduur in volgens het experimentele protocol. Voor een standaard stimulus-presentatiesequentie bestaande uit een 30 s pre-stimulus baseline, ongeveer 15 s visuele stimulatie en een 35 s post-stimulus periode, wordt de totale opnameduur ingesteld op 80 s.
OPMERKING: Dit protocol maakt doorgaans gebruik van 10 biologische replica's (rhopalia), bij voorkeur verkregen van 10 verschillende dieren, om de responssterkte te evalueren, in overeenstemming met Bielecki et al. (2023)14. Binnen een enkel preparaat ontvangt hetzelfde geïsoleerde rhopalium het volledige visuele stimulusprotocol, sequentieel gepresenteerd van laagste naar hoogste contrast; deze volgorde voorkomt dat het dier gewend raakt aan de afwezigheid van een aversieve consequentie bij hoog contrast, wat anders de responsiviteit voor vervolgens gepresenteerde stimuli met een lager contrast zou kunnen verminderen. Opeenvolgende opnames worden gestart met vaste intervallen van 2 min, wat resulteert in een interval van 105 s tussen het einde van één stimulusperiode en het begin van de volgende (voldoende om de pacemakerfrequentie terug te laten keren naar de baseline voor de volgende stimulus). Er worden geen technische replica's uitgevoerd; elk rhopalium ontvangt één presentatie per contrastniveau binnen zijn stimulussequentie. - De LabVIEW VI (geleverd als aanvullend materiaal, Aanvullend Bestand 3) genereert automatisch een TTL-puls vanuit de DAQ naar de TTL-muis op het juiste tijdstip binnen de opnamesequentie, waardoor de dia wordt verschoven en de visuele stimulus begint. Sla de verworven gegevens op als een tab-gescheiden .txt-bestand. Bij gebruik van de verstrekte VI worden de metadata van de opname handmatig in de bestandsnaam gecodeerd op het moment van opslaan.
OPMERKING: Gebruikers worden aangemoedigd om een consistente conventie voor bestandsnamen vast te stellen vóór aanvang van de opnames. Een preparaatidentificatie is een unieke code (bijv. een dier- of sessienummer) waarmee een bepaalde opname kan worden teruggevoerd naar het specifieke rhopalium en de experimentele sessie waarvan het afkomstig is. Het exacte benoemingsschema is aan de voorkeur van de onderzoeker overgelaten, mits het systematisch is en een ondubbelzinnige terugverwijzing van elke opname naar het bijbehorende preparaat mogelijk maakt — bijvoorbeeld kan een bestandsnaam de opnamedatum en -tijd combineren met de relevante stimulusparameters (bijv. contrastniveau, balkafmetingen en snelheid). - Na voltooiing van alle opnames voor een bepaald rhopalium wordt het rhopaliumweefsel afgevoerd via de standaard laboratoriumafvoer.
OPMERKING: Gebruikers worden aangemoedigd om een consistente conventie voor bestandsnamen vast te stellen vóór aanvang van de opnames. Een systematische bestandsnaam die datum, preparaatidentificatie en stimulusconditie bevat, is voldoende voor downstream-analyse. Presentatiesoftware verdient de voorkeur boven door LabVIEW gegenereerde visuele stimuli om twee praktische redenen: ten eerste zorgt het ervoor dat het beeld dat tussen opnames op het onderste lens-oog wordt geprojecteerd, te allen tijde bekend en gecontroleerd is, waardoor onbedoelde visuele stimulatie door software-interfaces of systeemschermen wordt voorkomen; ten tweede elimineert het het risico op schermverdonkering tussen opnamesessies, wat een light-OFF respons in de fotoreceptoren zou opwekken en spookachtige pacemakeractiviteit in de daaropvolgende baselineperiode zou introduceren. De waargenomen hoekgrootte en snelheid van de balk zullen niet-lineair variëren over het visuele veld vanwege de geometrie van het lens-oog. Deze niet-lineariteit wordt om twee redenen niet gecorrigeerd: ten eerste naderen vrij zwemmende dieren obstakels niet met een constante snelheid of richting, waardoor hoekcorrectie van beperkte naturalistische relevantie is; ten tweede zou correctie voor hoekgrootte wijzigingen in de totale schermhelderheid vereisen, wat de light ON/OFF respons zou activeren die betrokken is bij het detecteren van lichtstralen in mangrovebossen.
- Configureer de VI (geleverd als aanvullend materiaal, Aanvullend Bestand 3) om de volgende kanalen gelijktijdig via de DAQ te verwerven met een bemonsteringsfrequentie van 1 kHz:
7. Data-analyse
- Discriminatie van pacemaker-signalen in Igor Pro
OPMERKING: Zwempacemaker-signalen worden gedifferentieerd van actiepotentiaal-achtige signalen in het ruwe elektrofysiologische spoor voorafgaand aan de frequentieanalyse. De twee signalen kunnen gelijktijdig voorkomen in de opname en moeten worden onderscheiden voordat de timinggegevens van de pacemaker worden geëxtraheerd. Representatieve voorbeelden van beide signaaltypes en hun onderscheidende golfvormkenmerken zijn weergegeven in Figuur 2C,D.- Importeer het .txt-databestand in Igor Pro (versie 6.37 of later) met behulp van de Neuromatic-plugin (versie 2.00).
- Onderscheid zwempacemaker-signalen van actiepotentiaal-achtige signalen op basis van signaalduur en golfvormmorfologie.
OPMERKING: Zwempacemaker-signalen hebben een karakteristieke duur van ongeveer 45 ms en een samengestelde golfvormmorfologie die de gesommeerde activiteit van meerdere pacemakerneuronen weerspiegelt. Actiepotentiaal-achtige signalen hebben een kortere duur van ongeveer 10 ms en een scherpere, unitaire golfvorm. Signaalamplitude alleen is geen betrouwbaar discriminatiecriterium, aangezien de twee signaaltypes vergelijkbare amplitudes kunnen bereiken24 (Figuur 2C,D). Een representatieve figuur die de onderscheidende golfvormkenmerken van zwempacemaker-signalen en actiepotentiaal-achtige signalen illustreert, is bijgevoegd (Figuur 2C,D). Gebruikers worden aangemoedigd zich met beide signaaltypes vertrouwd te maken vóór de analyse, aangezien een verkeerde identificatie fouten in de schatting van de pacemakerfrequentie zal introduceren. Golfvormkenmerken van signalen zijn consistent binnen een bepaalde preparatie, maar kunnen enigszins variëren tussen preparaties; discriminatiecriteria moeten daarom voor elke preparatie afzonderlijk worden geëvalueerd, waarbij de hierboven beschreven golfvormkenmerken als algemene richtlijn dienen in plaats van als vaste universele drempelwaarden. Voor ambigue of intermediaire golfvormen die niet met zekerheid kunnen worden geclassificeerd, dient de ambiguïteit te worden opgelost in de richting tegenovergesteld aan de verwachte of gehypothetiseerde uitkomst — sluit bijvoorbeeld een ambigue gebeurtenis uit als een hoger signaal aantal de geteste hypothese zou ondersteunen, of neem deze juist mee als een lager aantal dat zou ondersteunen — om te voorkomen dat de schijnbare sterkte van het resultaat wordt opgeblazen. - Extraheer het tijdstempel van elk geïdentificeerd zwempacemaker-signaal om een tijdserie van pacemakergebeurtenissen voor elke opname te verkrijgen, en exporteer deze tijdstempels (bijv. naar een spreadsheet of .csv-bestand) voor verdere statistische analyse.
- Frequentieanalyse
- Bereken de pacemaker-signaalfrequentie als de inverse van het inter-signaalinterval over de gehele opname.
- Evalueer het effect van de visuele stimulus door de pacemakerfrequentie tijdens de baselineperiode vóór de stimulus, de stimulusperiode en de periode na de stimulus te vergelijken, gebruikmakend van pacemaker-signaaltijdstempels gecorrigeerd voor de vertraging tussen het in LabVIEW gelogde TTL-commando (Kanaal 2) en het via Arduino geverifieerde begin van de stimulus (Kanaal 3).
OPMERKING: Het lagere lensoog reageert op de stimulus op basis van de timing van de geverifieerde TTL, niet het software-gelogde commando; daarom wordt de geverifieerde starttijd van elke opname samen met de ruwe pacemaker- en TTL-tijdstempels geëxporteerd naar een spreadsheet (Aanvullende Tabel 1) en direct gebruikt door het SAS-analysescript om elk pacemaker-signaal in te delen in het venster vóór de stimulus, tijdens de stimulus of na de stimulus (Figuur 6); er worden geen tijdstempelwaarden gewijzigd in de spreadsheetfase. Tijdens ongestoorde baselinecondities is de pacemaker-signaalfrequentie 0,5–1 Hz. Visueel opgewekte reacties op obstakelvermijding boven de DTT worden gekenmerkt door een toename van de pacemakerfrequentie naar 2–3 Hz. Het fysiologische maximum is ongeveer 4 Hz, wat overeenkomt met een minimaal inter-signaalinterval van 250–280 ms25. Omdat de baseline-pacemakerfrequentie varieert tussen preparaties, worden frequentiewaarden voor elke opname gestandaardiseerd ten opzichte van de gemiddelde frequentie van die specifieke opname, berekend uit de perioden vóór en na de stimulus (met uitsluiting van de stimulusperiode zelf). Deze normalisatie maakt het mogelijk om de responsmagnitude tussen preparaties te vergelijken, onafhankelijk van verschillen in de baseline-pacemaker-snelheid. Volledige statistische procedures voor het evalueren van de significantie van de respons, inclusief het niet-lineaire model dat is gebruikt om de baseline-, stimulus- en post-stimulusperioden te vergelijken, zijn beschreven in Bielecki et al. (2023)14; de bijbehorende SAS-analysecode is beschikbaar via doi: 10.17632/csgymw8kjk.1. Een representatieve analysestroom, van ruw signaal via discriminatie, frequentieberekening en standaardisatie tot de uiteindelijke responsmetriek, is weergegeven in Figuur 7.
- Evalueer het effect van de visuele stimulus door de pacemakerfrequentie tijdens de baselineperiode vóór de stimulus, de stimulusperiode en de periode na de stimulus te vergelijken, gebruikmakend van pacemaker-signaaltijdstempels gecorrigeerd voor de vertraging tussen het in LabVIEW gelogde TTL-commando (Kanaal 2) en het via Arduino geverifieerde begin van de stimulus (Kanaal 3).
- Bereken de pacemaker-signaalfrequentie als de inverse van het inter-signaalinterval over de gehele opname.
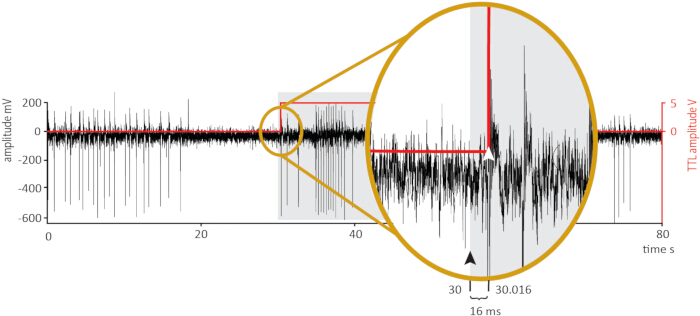
Figuur 6Representatieve demonstratie van pacemaker-tijdstempelcorrectie voor stimulus-geverifieerde timing. Voorbeeldopname die de vertraging illustreert tussen het in VI gelogde TTL-commando en het door de Arduino geverifieerde begin van de stimulus, individueel geverifieerd voor elke opname via de Arduino/fotodiode-timingketen en geëxporteerd naar een spreadsheet (Aanvullende tabel 1) voor direct gebruik door het SAS-analysescript bij het classificeren van elke tijdstempel van het pacemaker-signaal in het pre-stimulus, stimulus- of post-stimulusvenster. Zwarte lijn (linker y-as): elektrofysiologisch signaal (mV). Rode lijn (rechter y-as): TTL-amplitude (V). Het grijs gearceerde gebied markeert het nominale stimulusvenster zoals vastgelegd in de tijdstempel van het door de software gelogde TTL-commando. Inzet: vergroot beeld van het begin van de TTL. De zwarte pijl markeert de door LabVIEW gelogde verzendtijd van de TTL (t = 30,000 s, kanaal 2); de witte pijl markeert het geverifieerde begin van de stimulus, gedetecteerd via de Arduino/fotodiode-keten (t = 30,016 s, kanaal 3). Het getoonde interval van 16 ms is een representatief voorbeeld binnen de Klik hier om een grotere versie van deze figuur te bekijken.
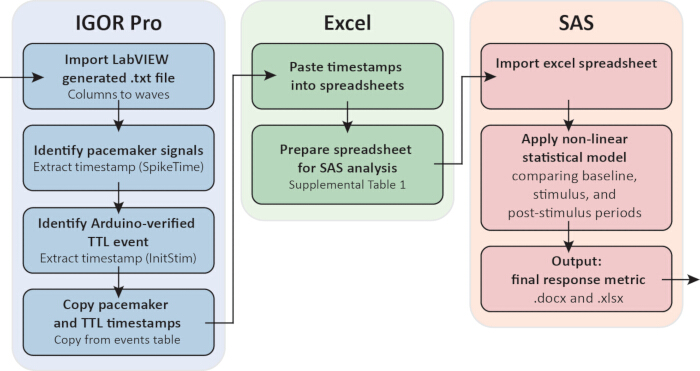
Figuur 7Representatieve analyseworkflow, van ruwe opname tot definitieve responsparameter. Pacemaker-signalen en TTL-tijdstempels worden geëxtraheerd uit de events-tabel van Igor Pro/Neuromatic: pacemaker-signaalgebeurtenissen worden geïdentificeerd op basis van duur en golfvormmorfologie (stap 7.1.2), en het door Arduino geverifieerde begin van de stimulus (InitStim, kanaal 3) wordt voor elke opname geëxtraheerd als een absoluut tijdstempel, niet als een berekende vertraging. Deze tijdstempels worden gekopieerd naar een spreadsheet (Aanvullende tabel 1), die wordt voorbereid voor SAS-analyse door het interspike-interval (Intval) en het tijdstip van het middelpunt (MidTime) voor elke pacemaker-signaalgebeurtenis te berekenen. SAS importeert het voorbereide spreadsheet en past een niet-lineair statistisch model toe (Bielecki et al., 202314) waarbij de pacemakerfrequentie wordt vergeleken over de pre-stimulus-, stimulus- en post-stimulusperioden, geclassificeerd ten opzichte van het geverifieerde begin van de stimulus per opname, om de uiteindelijke responsmetriek te genereren (.docx-samenvatting, .xlsx-datatabellen). Klik hier om een grotere versie van deze figuur te bekijken.
Resultaten
Signaalkwaliteit en spontane pacemakeractiviteit
Na de succesvolle bevestiging van de elektroden aan de doorgesneden epidermale stengelnervus moeten spontane pacemaker-signalen onmiddellijk zichtbaar zijn op de oscilloscoop. Een opname van hoge kwaliteit wordt gekenmerkt door grote, duidelijk opgeloste pacemaker-signalen met een amplitude na versterking van 400–600 mV, die voorkomen bij een stabiele spontane frequentie van 0,5–1 Hz, tegen een baseline met weinig ruis (ongeveer 10–15 mV piekdeviatie aan weerszijden van nul, wat overeenkomt met een signaal-ruisverhouding van ongeveer 27–40:1 binnen het doelberek van de amplitude) (Figuur 5B). Opnames met een signaalamplitude van slechts 100 mV kunnen worden geanalyseerd, maar verhogen de tijd voor signaaldiscriminatie in Igor Pro aanzienlijk en worden daarom niet aanbevolen, vooral niet voor onervaren operators. De samengestelde golfvormmorfologie van het pacemaker-signaal, die de gesommeerde activiteit van meerdere trmOC-neuronen weerspiegelt, onderscheidt dit van de kortere, scherpere actiepotentiaal-achtige signalen die mogelijk ook in de opname aanwezig zijn24 (Figuur 2C,D). Zoals beschreven in stap 7.1, moeten deze twee signaaltypes vóór de analyse worden onderscheiden op basis van de signaalduur (~45 ms voor pacemaker-signalen versus ~10 ms voor actiepotentiaal-achtige signalen) en de golfvormmorfologie. Amplitude alleen is geen betrouwbaar discriminatiecriterium. De signaaldiscriminatie in dit protocol werd uitgevoerd door één enkele, ervaren operator; formele statistieken voor inter-beoordelaarsbetrouwbaarheid zijn daarom niet berekend (zie Discussie, Beperkingen).
Visueel opgewekte pacemakerrespons
In een gezonde, responsieve preparatie produceert de presentatie van een bewegende verticale balkstimulus boven de DTT aan het oog met de onderste lens een duidelijke, tijdgekoppelde pacemakerrespons. De frequentie van het pacemakersignaal neemt toe tot 2–3 Hz, wat samenvalt met de passage van de voorrand van het obstakel over het centrum van het visuele veld, en keert terug naar de basislijnfrequentie na het beëindigen van de stimulus14 (Figuur 5B). De timing van het begin van de stimulus werd geverifieerd met behulp van de Arduino/fotodiode-timingketen (stap 3.3), in plaats van te vertrouwen op de door LabVIEW gerapporteerde tijdstempel. Bij gebruik van de TTL-muis om de presentatiesoftware vooruit te schuiven, is het geverifieerde bereik <20 ms; bij handmatige triggering (een operator die op een ongewijzigde muis klikt, getimed op het gewenste begin) is het geverifieerde bereik 100–150 ms. Omdat de responsanalyse gebruikmaakt van het geverifieerde begin (Kanaal 3) in plaats van de door de software gerapporteerde trigger (Kanaal 2), heeft dit bereik geen invloed op de kwantificering van de respons, ongeacht de trigger-methode. Deze frequentiestijging vormt het elektrofysiologische correlaat van het obstakelvermijdingsgedrag dat wordt waargenomen bij vrij zwemmende dieren, en de aanwezigheid ervan bevestigt zowel de levensvatbaarheid van de preparatie als de correcte optische uitlijning van het oog met de onderste lens met het projectiescherm.
De grootte van de pacemakerrespons wordt geëvalueerd aan de hand van de onmiddellijke signaalfrequentie, berekend als de inverse van het inter-signaalinterval tussen opeenvolgende pacemakergebeurtenissen. Deze benadering vereist minimaal twee opeenvolgende pacemakersignalen om een frequentiewaarde vast te stellen, wat een inherente beveiliging biedt tegen fout-positieve responsdetectie door enkele geïsoleerde signalen.
Het contrast van de bewegende staafstimulus bepaalt de grootte van de opgewekte respons. In Bielecki et al. (2023)14 werden drie contrastniveaus gebruikt (c = 0.20, 0.40 en 0.80), met een tussenruimte van één f-stop. Deze specifieke contrastwaarden werden gekozen om de totale duur van het protocol binnen het haalbare opnamevenster van ongeveer 1 h te houden. Onderzoekers die de contrastgevoeligheidslimieten van het onderste lensoog of andere specifieke visuele responspropenschappen onderzoeken, dienen contrastniveaus te kiezen die passen bij hun experimentele vraag, in plaats van deze waarden strikt over te nemen.
Suboptimale opnames en foutmodi
In de praktijk levert ongeveer 90% (9 van de 10) van de preparaten die voldoen aan het criterium voor levensvatbaarheid na acclimatisatie (stap 6.1.6) een stabiele spontane activiteit en een meetbare visueel opgewekte respons op; dit aandeel is sterk afhankelijk van de ervaring van de operator. De overige preparaten falen meestal om een van de volgende redenen: de meest voorkomende faalmodus is het progressieve verlies van de elektrodeafdichting tijdens de registratiesessie. Dit uit zich als een geleidelijke afname van zowel de amplitude van het pacemaker-signaal als het niveau van de achtergrondruis, wat wijst op een verslechterend elektrisch contact tussen de elektrodepunt en het zenuwuiteinde (Figuur 5A). Als dit patroon wordt waargenomen, moet de zuiging worden losgelaten en opnieuw worden aangebracht na het licht herpositioneren van de elektrodepunt op het oppervlak van de doorgesneden steel. Als de signaalamplitude niet herstelt, moet de levensvatbaarheid van het preparaat worden beoordeeld door te controleren op spontane pacemakeractiviteit. Een volledige afwezigheid van signaal na pogingen tot herbevestiging in een preparaat dat langer dan 1 h is geïsoleerd, weerspiegelt waarschijnlijk preparaatdeterioratie in plaats van elektrodefalen, en er moet een vers preparaat worden gebruikt.
Een tweede foutmodus is de afwezigheid van een visueel opgewekte respons, ondanks een stabiele spontane pacemakeractiviteit. Dit dient aanleiding geven tot een herbeoordeling van de optische configuratie voordat wordt geconcludeerd dat de preparatie niet reageert. De meest voorkomende oorzaken zijn een verkeerde uitlijning van de onderste lens van het oog ten opzichte van het projectiescherm en verzadiging van de fotoreceptoren door overmatige bestraling. De biologische kalibratieprocedure beschreven in stap 4.1.5 moet worden herhaald, en de attenuatie van het neutraaldichtheidsfilter moet indien nodig worden verhoogd. Er moet ook worden geverifieerd dat de bewegende balkstimulus gedurende de gehele beweging binnen het visuele veld blijft, aangezien het verlaten van het visuele veld door de stimulus een light-OFF-respons zou opwekken en spurieuze pacemakeractiviteit in de registratie zou introduceren.
Een derde patroon — hoge achtergrondruis die pacemaker-signalen maskeert — weerspiegelt meestal een aardingsprobleem of interferentie van het lichtnet. De ster-aardingsconfiguratie die in stap 3.2.1 wordt beschreven, moet worden gecontroleerd en er moet worden bevestigd dat het 50/60 Hz notch-filter is ingeschakeld.
Aanvullend bestand 1: Arduino-sketch. Implementeert stimulus-onsetdetectie op basis van een fotodiode: de Arduino Uno scant de fotodiode, waarbij het zwart-wit indicatievierkant op het presentatiescherm (stap 1.4.2) met 1 kHz wordt gemonitord, zet het ruwe analoge signaal via drempelvergelijking om in een zuivere digitale TTL-puls en stuurt deze puls uit als het geverifieerde stimulus-timingsignaal (Kanaal 3, stap 6.2.1).Klik hier om dit bestand te downloaden.
Aanvullend bestand 2: Representatief stimulusbestand. Voorbeeld van een presentatiesoftware-bestand (Keynote) waarin de bewegende balk-visuele stimulus is geïmplementeerd als één continue objectanimatie en het zwart-witte timing-verificatie-indicatievierkant (stap 1.4). Lezers die hun eigen stimulussequenties ontwerpen, moeten ervoor zorgen dat het beeld stabiel blijft voor een adequate accommodatieperiode vóór elke stimulusonset; de fotodiode/Arduino-feedbacklus (stap 3.3) verifieert de werkelijke stimulustiming, ongeacht de gebruikte specifieke presentatiesoftware of het ontwerp van de dia's.Klik hier om dit bestand te downloaden.
Aanvullend bestand 3: LabVIEW Virtual Instrument (VI). Configureer de NI USB-6343 DAQ met twee analoge ingangskanalen — AI0 (elektrofysiologisch signaal van de versterker) en AI1 (door Arduino geverifieerde TTL bij aanvang van de stimulus, het fotodiode-terugkoppelsignaal) — en één analoog uitgangskanaal, AO0, dat een TTL-puls naar de TTL-muis stuurt op het geprogrammeerde tijdstip van de stimulus om de dia van de presentatiesoftware verder te schakelen. Het resulterende .txt-uitvoerbestand registreert drie kolommen: het elektrofysiologische signaal (AI0), het door LabVIEW gelogde tijdstip van het AO0-triggercommando (een software-record, geen opnieuw verkregen signaal) en de door Arduino geverifieerde TTL (AI1).Klik hier om dit bestand te downloaden.
Aanvullende tabel 1: SAS-inputbestandsformaat. Kolomdefinities en een uitgewerkt voorbeeld van het spreadsheet dat naar SAS is geüpload voor statistische analyse (stap 7.2.1). Vier opeenvolgende tijdstempels van pacemaker-signalen uit een representatieve opname illustreren de afleiding van het interspike-interval (Intval) en de middenpunt-tijdstempel (MidTime) die worden gebruikt bij de frequentieberekening; de laatst vermelde gebeurtenis heeft geen Intval/MidTime-waarde, aangezien er geen volgende tijdstempel bestaat om het interval te voltooien.Klik hier om dit bestand te downloaden.
Discussie
Verschillende stappen in dit protocol zijn cruciaal voor het verkrijgen van betrouwbare opnames. De meest bepalende stap is de vervaardiging en voorbereiding van de zuigelektrode. Hoewel elke elektrode die de signaal-ruisverhouding optimaliseert acceptabel is voor standaard visueel opgewekte pacemaker-opnames, wordt een aansluitweerstand van ongeveer 1 MΩ specifiek kritisch wanneer de preparatie wordt gebruikt voor het toedienen van een elektrische ongeconditioneerde stimulus, aangezien dit nodig is voor het berekenen van de afgegeven stroom14. Voor enkel opnamedoeleinden is het primaire criterium de signaalkwaliteit in plaats van een specifieke weerstandswaarde.
Even kritisch is de biologische kalibratie van het optische systeem voorafgaand aan het starten van de opnames (stap 4.1.5). Omdat de output van de projector, de lensconfiguratie en de reflectie van het scherm samen bepalen wat de effectieve irradiantie bij het onderste lens-oog is, kan er geen universeel toepasbare irradiantie-waarde worden gespecificeerd. De biologische kalibratie (waarbij de frequentierespons van de pacemaker op een stimulus met maximaal contrast als criterium voor het dynamisch bereik van de fotoreceptoren wordt gebruikt) biedt een zelfvaliderende, hardware-onafhankelijke methode om de juiste stimulusintensiteit vast te stellen. Deze stap mag niet worden overgeslagen, aangezien verzadiging van de fotoreceptoren door overmatige irradiantie de visueel opgewekte pacemaker-responsen zal opheffen, wat kan worden aangezien voor een niet-responsief preparaat.
Het is cruciaal om het rhopalium gedurende de isolatie en overdracht volledig ondergedompeld te houden. Het rhopaliale zenuwstelsel is uiterst gevoelig voor uitdroging, en zelfs een korte blootstelling aan lucht kan de preparatie onomkeerbaar beschadigen. Alle overdrachtstappen moeten in aanwezigheid van zeewater worden uitgevoerd, en de opnamekamer moet worden gevuld met met 0,20 µm gefilterd zeewater uit het cultuurreservoir voordat het rhopalium wordt ingebracht.
Ten slotte vereist de plaatsing van de elektroden op het oppervlak van de doorgesneden steel geduld. De epidermale zenuwuiteinden van de steel zijn niet altijd visueel identificeerbaar, en de correcte plaatsing moet worden bevestigd door het verschijnen van spontane pacemaker-signalen op de oscilloscoop.
De meest voorkomende oorzaak van het mislukken van de registratie is het verlies van de elektrodeafdichting tijdens de sessie. Om dit risico te minimaliseren, moeten alle protocollen binnen één uur na de isolatie van het rhopalium worden voltooid. De hier aanbevolen limiet van één uur is een conservatieve praktische keuze, gebaseerd op de algemene verwachting dat een geïsoleerde neurale preparatie, losgekoppeld van de rest van het dier, niet onbeperkt volledig representatief kan worden geacht voor de intacte fysiologische functie, zelfs wanneer de pacemakeractiviteit aanhoudt. Geïsoleerde rhopalia blijven levensvatbaar, in de zin dat ze detecteerbare pacemakersignalen genereren, gedurende een aanzienlijk langere periode dan het registratievenster dat in dit protocol wordt gebruikt, tot ongeveer 5 h na isolatie; het is echter niet systematisch gekarakteriseerd of responsen die laat in dit venster worden geregistreerd nog volledig representatief blijven voor een intacte preparatie, en de limiet van 1 h wordt gebruikt als een conservatieve buffer in plaats van als een nauwkeurig gedefinieerde drempelwaarde. Progressief verlies van de elektrodeafdichting is een aparte, gemakkelijk identificeerbare technische foutmodus en de meest voorkomende oorzaak van signaalverlies binnen een enkele registratiesessie (zie hieronder), maar dit sluit niet uit dat de staat van de preparatie bijdraagt aan subtielere veranderingen in de responsiviteit over tijd. Als er verlies van afdichting optreedt tijdens een registratie, kan de zuigkracht worden opgeheven, de elektrode opnieuw worden gepositioneerd op het oppervlak van de doorgesneden steel en de zuigkracht opnieuw worden aangebracht. Indien de preparatie echter langer dan één uur geleden is geïsoleerd, is het raadzaam om met een verse preparatie te beginnen in plaats van tijd te investeren in het oplossen van problemen bij een preparatie waarvan de kwaliteit afneemt.
Filterinstellingen moeten worden beschouwd als startpunten en niet als vaste parameters. De banddoorlaatfilterwaarden die in dit protocol worden gespecificeerd (hoogpass 1 Hz, laagpass 500 Hz, 50/60 Hz notch) zijn waarden die de signaal-ruisverhouding optimaliseren in de opnameomgeving van de auteurs. Laboratoria met andere niveaus van elektrische interferentie, of die andere versterker-modellen gebruiken, moeten deze instellingen mogelijk empirisch aanpassen via de bediening van de versterker, terwijl het signaal aan het begin van elke sessie op het oscilloscoopscherm wordt gemonitord.
Als er geen spontane pacemakeractiviteit is na het aanbrengen van de elektrode, dient de preparatie te worden beoordeeld voordat er wordt gezocht naar storingen in de elektrode. Een gezond geïsoleerd rhopalium vertoont binnen enkele minuten na het aanbrengen van de elektrode spontane pacemaker-signalen van 0,5–1 Hz. De afwezigheid van spontane activiteit weerspiegelt meestal schade aan de preparatie tijdens isolatie of overdracht, in plaats van een defect aan de elektrode. Omgekeerd, als er wel spontane activiteit is maar er geen visueel opgewekte respons wordt verkregen, dient de optische kalibratie te worden herhaald voordat wordt geconcludeerd dat de preparatie niet reageert.
Voor laboratoria die dit protocol aanpassen aan andere hardware kan de TTL-muis en de Arduino Uno-tijdverificatieketen die in stap 3.3 wordt beschreven, worden vervangen door elk systeem dat een hardwarematig, software-onafhankelijk stimulusvensterverslag biedt dat synchroon met het elektrofysiologische spoor wordt vastgelegd. De specifieke implementatie die hier wordt beschreven, is ontwikkeld om de LabVIEW-acquisitieomgeving op een pc te koppelen aan de presentatiesoftware op een aparte computer, en vormt een praktische technische oplossing voor een veelvoorkomende uitdaging bij crossplatform-integratie. Het onderliggende principe dat softwaretriggers alleen onvoldoende zijn voor een nauwkeurige analyse van de stimulus-respons-timing, is van toepassing ongeacht het gebruikte specifieke hardwareplatform.
De belangrijkste beperking van de geïsoleerde rhopalium-preparatie is dat er wordt geregistreerd vanuit een enkel, geïsoleerd rhopalium. In het intacte dier zijn de vier rhopalia verbonden via de ringzenuw15 en worden hun outputsignalen geïntegreerd om gecoördineerd zwimgedrag te produceren. Inter-rhopaliale communicatie is in deze preparatie niet toegankelijk. Echter, voor het doel van het onderzoeken van de verwerking van visuele informatie binnen één enkel rhopaliaal zenuwstelsel, is deze isolatie juist een kracht in plaats van een zwakte. Het elimineert de storende invloed van input uit andere rhopalia en maakt het mogelijk om de visuele responseigenschappen van een enkel RNS volledig te karakteriseren.
Het isoleren van het rhopalium sluit ook multimodale sensorische context buiten het rhopalium zelf uit; de vermeende chemoreceptoren die anatomisch op het oppervlak zijn beschreven17 zijn functioneel niet gekoppeld aan de pacemakerrespons, waardoor het signaal redelijkerwijs kan worden geïnterpreteerd als een aflezing van visuele verwerking die grotendeels ongecompliceerd is door niet-visuele input. Een fundamentelere beperking is dat de extracellulaire opname van de stengelzenuw slechts het geïntegreerde trmOC-motorische outputsignaal vastlegt. Individuele subOC-bijdragen aan de visuele verwerking kunnen elektrofysiologisch niet worden onderscheiden; hiervoor zijn ruimtelijk opgeloste in vivo imaging-benaderingen vereist. De hier beschreven elektrofysiologische methode is daarom een maat voor het uiteindelijke geïntegreerde motorische commando, en niet voor de tussenliggende verwerkingsstappen binnen het RNS.
Dit heeft een belangrijk praktisch gevolg: het elektrofysiologische protocol voor het geïsoleerde rhopalium is geen op zichzelf staande methode. Het is essentieel dat er voorafgaand aan het ontwerpen van experimenten met het geïsoleerde rhopalium een gedragsanalyse van het hele dier wordt uitgevoerd, om vast te stellen welke visuele stimuli gedragingen uitlokken die de contractiefrequentie van de klok veranderen. Gedragingen die geen verandering in de pacemaker-signaalfrequentie teweegbrengen, kunnen met deze benadering niet worden beoordeeld. De elektrofysiologische uitlezing is specifiek een maat voor de output van de zwemmotoriek, en experimentele ontwerpen moeten worden gebaseerd op voorafgaande gedragskarakterisering om te garanderen dat de gekozen stimuli deze output activeren.
Zowel het succes van de opname als de signaalclassificatie zijn afhankelijk van de ervaring van de operator. Ongeveer 90% van de preparaten die voldoen aan het viabiliteitscriterium voor acclimatisatie (stap 6.1.6) levert stabiele spontane activiteit en een meetbare visueel opgewekte respons op in de handen van een ervaren operator; deze proportie wordt naar verwachting lager zijn tijdens de vroege fasen van de leercurve. Signaaldiscriminatie tussen pacemaker- en actiepotentiaal-achtige golfvormen (stap 7.1.2) werd in deze studie uitgevoerd door één enkele, ervaren operator; omdat formele toetsing van de inter-beoordelaarsbetrouwbaarheid meerdere onafhankelijke waarnemers vereist, was het niet mogelijk om een statistiek voor de overeenstemming tussen beoordelaars te berekenen. De interne consistentie werd in plaats daarvan gewaarborgd door ambigue golfvormen te vergelijken met een signaal van bekende identiteit binnen dezelfde opname, doorgaans een opgewekte respons met maximaal contrast.
De keuzes voor hardware en software in dit protocol — een aangepaste projectorlens, een op maat gemaakte TTL-muis, de Arduino-timingsketen en LabVIEW/Igor Pro/SAS — weerspiegelen de apparatuur en expertise die reeds beschikbaar waren in het laboratorium van de auteurs, en zijn geen vereisten van de methode. De projectorlens is aangepast omdat de standaardconfiguratie niet aan de eisen van de opstelling voldeed. De TTL-muis vormt de brug tussen de stimuluscomputer en de acquisitiecomputer: LabVIEW stuurt een TTL-puls naar de muis en registreert het verzendtijdstip (Kanaal 2), en de klik van de muis activeert de stimulus via USB. Omdat de vertraging tussen deze geregistreerde trigger en de eigenlijke schermwijziging variabel is, verifieert een onafhankelijke fotodiode/Arduino-keten het werkelijke begin van de stimulus en stuurt een tweede TTL terug naar de DAQ (Kanaal 3); er bestaat mogelijk een commercieel alternatief voor de muis, maar dit is onbekend bij de auteurs. Geen van deze hardware vereist gespecialiseerde fabricagevaardigheden of hoge kosten, en elk vervangend acquisitiesysteem hoeft enkel te voldoen aan dezelfde vereiste van gesynchroniseerde multi-channel sampling van 1 kHz, inclusief de daarbij behorende elektronische of programmeertechnische expertise. Met één uitzondering: het aanpassen van een geschikte analoge versterker vereist expertise in ruisarme schakelingenontwerp, waarvan niet wordt verwacht dat de lezer over beschikt.
T. cystophora combineert de visuele geavanceerdheid van genetisch hanteerbare systemen zoals Drosophila en zebravis met de hanteerbaarheid op circuitniveau van numeriek eenvoudige systemen zoals C. elegans: het rhopaliale zenuwstelsel bestaat uit ongeveer 1000 neuronen, vergeleken met ongeveer 200.000 in het brein van Drosophila1 en 302 in het gehele zenuwstelsel van C. elegans2. Een verder voordeel van dit systeem is de sensorische hiërarchie: T. cystophora beschikt over meerdere sensorische modaliteiten, waaronder mechanoreceptie (functioneel betrokken bij associatief leren14) en vermoedelijke chemoreceptie (anatomisch beschreven maar functioneel niet aangetoond17), naast visie. Binnen de geïsoleerde rhopalium-preparatie is echter alleen visie functioneel aangetoond als drijfveer voor de pacemakerrespons die in dit protocol wordt beoordeeld, waardoor het signaal kan worden geïnterpreteerd als een relatief ongestoorde weergave van visuele verwerking, zonder de interpretatieve complicatie die ontstaat wanneer meerdere gelijktijdige actieve zintuigen gezamenlijk een gedragsrespons vormgeven. Visuele stimuli kunnen met precisie worden gespecificeerd in ruimte, tijd en contrast, terwijl het pacemakersignaal kan worden gebruikt als een kwantitatieve proxy voor visueel gestuurde motorische output, relevant voor het gedrag van het gehele dier14.
Naast visuele elektrofysiologie is de isolatie van het rhopalium met succes toegepast voor farmacologisch onderzoek naar het RNS via assays met in het bad toegevoegde neurotransmitters en neuromodulatoren, waardoor de identificatie van de transmissiesystemen die de pacemaker-output moduleren mogelijk werd24. De preparatie is daarnaast geschikt voor calcium- en spanningsimaging-benaderingen. Voorlopig ongepubliceerd werk in het laboratorium van de auteurs, waarbij gebruik werd gemaakt van een celpermeabele calciumindicator, ondersteunt de haalbaarheid van calciumimaging in deze preparatie; spanningsimaging is nog niet getest. Dergelijke benaderingen zouden de architectuur van het subOC–trmOC-netwerk zelf direct kunnen testen, wat momenteel nog een werkmodel is, en zouden de ruimtelijke resolutie bieden die nodig is om de activiteit van subOC en trmOC onafhankelijk van elkaar te onderzoeken tijdens visuele stimulatie, een mogelijkheid die enkel met extracellulaire registraties niet geboden kan worden. Samen positioneren deze complementaire benaderingen het geïsoleerde rhopalium van T. cystophora als een zeer hanteerbare preparatie voor onderzoek op systeemniveau naar visuele verwerking en sensomotorische integratie in een zenuwstelsel met een gedefinieerde en beperkte complexiteit.
Openbaarmakingen
De auteurs verklaren dat er geen concurrerende belangen zijn.
Dankbetuigingen
De auteurs zijn Dan-eric Nilsson dankbaar voor het gebruik van de afbeelding van het rhopalium (Figuur 1B), de technische ondersteuning van Mathias Hoppe, Ingo Klein, Olaf Wendt en Holger Voigt (Universiteit van Kiel), en de hulp van de leden van de Sensory Biology Group (Universiteit van Kopenhagen) bij het onderhoud van de culturen. Gefinancierd door de Deutsche Forschungsgemeinschaft (DFG, Duitse Onderzoeksgemeenschap) – Project-ID 567357102 (J.B.)
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Petrischaal van 35 mm | Nunc | 153066 | Elke gelijkwaardige geschikte petrischaal |
| Arduino Uno | Arduino | — | Zet fotodiodesignaal om naar TTL voor verificatie van de timing van de stimulus; verversingssnelheid van 1 kHz |
| Biconvexe lens f = 30 mm | Linos | G063-022-000 | Vervanging voor de lens van de fabrikant; focust het beeld op de projectieschermwand van de opnamekamer |
| Borosilicaatglazen capillaire buis, 1,16 mm binnendiameter × 2,00 mm buitendiameter × 80 mm L | Wetenschappelijke producten | GB200-8P | Voor de fabricage van zuigelektroden |
| Wegwerppipet | Sarstedt | 86.1171 | Snijd de punt af tot een opening van ~8 mm voor de overdracht van het dier |
| Elektrodehouder PPH-OP-BNCPC | ALA Scientific Instruments | PPH-OP-BNCPC | BNC-houder met zuigpoort; geleverd met ~0,25 mm Ag-draad |
| EXT-10-2F Extracellulaire versterker | NPI Electronic | — | Differentiële AC-gekoppelde versterker; headstage ×10, hoofdversterker ×100, totale versterking ×1000; geïntegreerd banddoorlaatfilter: hoogdoorlaat 1 Hz, laagdoorlaat 500 Hz; 50/60 Hz notchfilter-extensie geactiveerd; geleverd met headstage-arm |
| Dekglas voor haemacytometer 20 mm × 26 mm | Carl Roth | L 189 | Rust op de randen van het dekglas door negatief drijfvermogen; robuuster dan standaard dekglazen |
| Igor Pro 6.37 | WaveMetrics Inc. | Versie 6.37 | Lake Oswego, OR, VS; voor pacemaker-signaalanalyse |
| LabVIEW 2016 | National Instruments | Versie 2016 | Software voor acquisitie en stimuluscontrole; VI geleverd als aanvullend materiaal |
| Luer-lockspuit | — | — | Generiek; elke standaard laboratoriumspuit met Luer-lock is geschikt |
| Microforge MF-2 | Narishige | — | Voor het polijsten van de elektrodepunt (Optie A) |
| Micromanipulator MM33 | MäHet lijkt erop dat u een onvolledige invoer heeft verzonden ("rzh"). Kunt u de volledige Engelse brontekst aanleveren die u vertaald wilt hebben naar het Nederlands?ägebruiker Wetzlar | 00-42-101-0000 (rechts) / 00-42-102-0000 (links) | Handmatige drieassige manipulator; twee vereist (voor het vasthouden van de pipet en de registreerelektrode) |
| Micropipet-trekker, Flaming/Brown P-1000 | Sutter Instrument | P-1000 | Trekprogramma: Lijn 1×1: verwarming 535, trekken 0, snelh. 12, tijd 200, druk 600, opwarmcurve 540; Lijnen 2–4 × 3: verwarming 532, trekken 0, snelheid 12, tijd 100 |
| Neuromatic-plug-in v2.00 | — | Versie 2.00 | Voor Igor Pro; discriminatie van pacemaker-signalen en extractie van tijdstempels |
| Grijsfilter | Thorlabs | NE10A | 10% transmissie; attenuatie dient empirisch te worden gevalideerd door middel van biologische kalibratie (stap 4.1) |
| NI USB-6343 DAQ | National Instruments | 781438-01 | 16-bits multifunctionele DAQ; elektrofysiologische acquisitie, TTL-stimulusafgifte voor muizen, Arduino TTL-ingang; bemonsteringssnelheid 1 kHz |
| Optoma ML750 DLP-projector | Optoma | ML750 | Lenssysteem van de fabrikant verwijderd; vervangen door een enkele biconvexe lens met f = 30 mm |
| Oscilloscoop DS1102E | Rigol | DS1102E | Voor real-time signaalmonitoring tijdens de plaatsing van elektroden en de optimalisatie van filters |
| Pasteurpipet 150 mm | Carl Roth | 4518 | Voor rhopaliumtransfer |
| Fotodiode BRW21 | OSRAM | BRW21 | Siliconfotodiode; bewaakt zwart-wit indicatievierkant op computerscherm |
| SAS | SAS Institute Inc. | doi: 10.17632/csgymw8kjk.1 | Cary, NC, USA; statistische analyse van pacemakerrespons; code beschikbaar via doi: 10.17632/csgymw8kjk.1 |
| Siliconenslang | Erich Eydam KG | 9205000 | Voor de zuigaansluiting tussen de電rodehouder en de spuit |
| spuitfilter Filtropur S, 0.20 µm PES | Sarstedt | 83.1826.001 | Voor het filteren van zeewater uit de kweektank voor de opnamekamer en preparatieschalen |
| Vannas-scharen | World Precision Instruments | 500086 | 0,025 mm × 0,015 mm mesje; voor doorsnijding van de rhopaliale steel |
| WTE var 3185 | Assistent | — | Temperatuurregelaar voor waterbad |
Referenties
- Raji JI, Potter CJ. The number of neurons in Drosophila and mosquito brains. PLoS ONE. 2021;16(5):e0250381.
- Sasakura H, Mori I. Behavioral plasticity, learning, and memory in C. elegans. Curr Opin Neurobiol. 2013;23(1):92-99.
- Bielecki J, et al. Pattern recognition in the box jellyfish rhopalial nervous system mimicked by an ensemble of pulsed coupled oscillators. Springer Series on Bio- and Neurosystems. Springer, Cham, 2024.
- Bielecki J, Garm A. Vision made easy: Cubozoans can advance our understanding of systems-level visual information processing. Marine organisms as model systems in biology and medicine. Springer, Cham, 2018.
- Nilsson D-E, Gislén L, Coates MM, Skogh C, Garm A. Advanced optics in a jellyfish eye. Nature. 2005;435(7039):201-205.
- Yatsu N. Notes on the physiology of Charybdea rastonii. J Coll Sci Imp Univ Tokyo. 1917;40:1-12.
- Bielecki J, et al. Ocular and extraocular expression of opsins in the rhopalium of Tripedalia cystophora (Cnidaria: Cubozoa). PLoS One. 2014;9(6):e98870.
- Plachetzki DC, Degnan BM, Oakley TH. The origins of novel protein interactions during animal opsin evolution. PLoS One. 2007;2(10):e1054.
- Koyanagi M, et al. Jellyfish vision starts with cAMP signaling mediated by opsin-Gs cascade. Proc Natl Acad Sci U S A. 2008;105(40):15576-15580.
- Kozmik Z, et al. Assembly of the cnidarian camera-type eye from vertebrate-like components. Proc Natl Acad Sci U S A. 2008;105(26):8989-8993.
- Garm A, Oskarsson M, Nilsson D-E. Box jellyfish use terrestrial visual cues for navigation. Curr Biol. 2011;21(9):798-803.
- Buskey E. Behavioral adaptations of the cubozoan medusa Tripedalia cystophora for feeding on copepod (Dioithona oculata) swarms. Mar Biol. 2003;142(2):225-232.
- Garm A, Mori S. Multiple photoreceptor systems control the swim pacemaker activity in box jellyfish. J Exp Biol. 2009;212(24):3951.
- Bielecki J, Dam Nielsen SK, Nachman G, Garm A. Associative learning in the box jellyfish Tripedalia cystophora. Curr Biol. 2023;33(19):4150-4159.e5.
- Garm A, Poussart Y, Parkefelt L, Ekström P, Nilsson D-E. The ring nerve of the box jellyfish Tripedalia cystophora. Cell Tissue Res. 2007;329(1):147-157.
- Garm A, Hedal I, Islin M, Gurska D. Pattern- and contrast-dependent visual response in the box jellyfish Tripedalia cystophora. J Exp Biol. 2013;216(24):4520-4529.
- Skogh C, Garm A, Nilsson D-E, Ekström P. Bilaterally symmetrical rhopalial nervous system of the box jellyfish Tripedalia cystophora. J Morphol. 2006;267(12):1391-1405.
- Nielsen SKD, Koch TL, Wiisbye SH, Grimmelikhuijzen CJP, Garm A. Neuropeptide expression in the box jellyfish Tripedalia cystophora—new insights into the complexity of a "simple" nervous system. J Comp Neurol. 2021;529(11):2865-2882.
- Satterlie RA, Spencer AN. Swimming control in a cubomedusan jellyfish. Nature. 1979;281(5727):141-142.
- Garm A, Bielecki J. Swim pacemakers in box jellyfish are modulated by the visual input. J Comp Physiol A. 2008;194(7):641.
- Govardovskii VI, Fyhrquist N, Reuter T, Kuzmin DG, Donner K. In search of the visual pigment template. Vis Neurosci. 2000;17(4):509-528.
- Garm A, Coates MM, Gad R, Seymour J, Nilsson D-E. The lens eyes of the box jellyfish Tripedalia cystophora and Chiropsalmus sp. are slow and color-blind. J Comp Physiol A. 2007;193(5):547-557.
- Stamatis S-A, Worsaae K, Garm A. Regeneration of the rhopalium and the rhopalial nervous system in the box jellyfish Tripedalia cystophora. Biol Bull. 2018;234(1):22-36.
- Bielecki J, Nachman G, Garm A. Swim pacemaker response to bath applied neurotransmitters in the cubozoan Tripedalia cystophora. J Comp Physiol A. 2013;199(9):785-797.
- Bielecki J, Høeg JT, Garm A. Fixational eye movements in the earliest stage of metazoan evolution. PLoS ONE. 2013;8(6):e66442.