Geïntegreerde bio-informatica- en experimentele analyses identificeerden LINC01871 als een potentiële voorspeller voor de gevoeligheid voor cycline-afhankelijke kinase 4/6-remmers en toonden aan dat overexpressie van LINC01871 de proliferatie van borstkanker onderdrukt en geassocieerd is met een verminderde NF-κB-signalering.
Onderzoeksartikel
LINC01871-gemedieerde gevoeligheid voor cycline-afhankelijke kinase 4/6-remmers in menselijke borstkanker
In dit artikel
Samenvatting
Samenvatting
Borstkanker blijft de meest gediagnosticeerde maligniteit bij vrouwen, en resistentie tegen cycline-afhankelijke kinase 4- en 6 (CDK4/6)-remmers beperkt de effectiviteit van de behandeling op lange termijn. Deze studie was gericht op het identificeren van long non-coding RNA's (lncRNA's) die geassocieerd zijn met de voorspelde gevoeligheid voor CDK4/6-remmers en op het onderzoeken van hun biologische functies bij borstkanker. Transcriptomische gegevens van The Cancer Genome Atlas (TCGA) en gegevens over geneesmiddelgevoeligheid van de Genomics of Drug Sensitivity in Cancer 2 (GDSC2)-database werden geïntegreerd, en de geneesmiddelgevoeligheid werd voorspeld met behulp van het oncoPredict-algoritme. Kandidaat lncRNA's werden geïdentificeerd via differentieel expressieonderzoek, weighted gene co-expression network analysis, prognostische analyse en machine learning. De biologische functies van LINC01871 werden vervolgens geëvalueerd met in vitro en in vivo experimenten. Er werden tweeenzestig lncRNA's geïdentificeerd die geassocieerd waren met de voorspelde gevoeligheid voor ribociclib en palbociclib, waarvan zes kern-lncRNA's werden geselecteerd. LINC01871 vertoonde de hoogste differentiële prestaties voor de voorspelde geneesmiddelgevoeligheid. Overexpressie van LINC01871 was geassocieerd met een verhoogde gevoeligheid van borstkankercellen voor ribociclib en palbociclib, remming van celproliferatie, bevordering van apoptose en onderdrukking van nuclear factor kappa B (NF-κB)-signalering. Single-cell transcriptomische analyse toonde een hoge expressie van LINC01871 aan in T-cellen en natural killer (NK)-cellen, terwijl transcriptoom-gebaseerde analyses van immuuninfiltratie aantoonden dat een hoge expressie van LINC01871 geassocieerd was met een verhoogde immuuninfiltratie. Deze bevindingen identificeren LINC01871 als een kandidaat biomarker voor gevoeligheid voor CDK4/6-remmers en tonen de tumorsuppressieve effecten ervan bij borstkanker aan. Verdere klinische en mechanistische studies zijn vereist om de voorspellende waarde en therapeutische relevantie ervan te valideren.
Inleiding
Borstkanker blijft een belangrijke oorzaak van kankersterfte bij vrouwen wereldwijd, ondanks voortdurende vooruitgang in het klinische beheer1,2. De behandeling is progressief uitgebreid voorbij endocriene therapie en chemotherapie om moleculair gerichte benaderingen te omvatten3. Hiervan hebben remmers van cycline-afhankelijke kinasen 4 en 6 (CDK4/6), zoals ribociclib, palbociclib en abemaciclib, aanzienlijke klinische voordelen opgeleverd bij oestrogeenreceptor- en/of progesteronreceptor-positieve borstkanker4,5,6. Desondanks kan een langdurige behandeling gepaard gaan met verworven resistentie, wat de duurzaamheid van het therapeutische voordeel beperkt7.
CDK4/6-remming werkt hoofdzakelijk via de Rb–E2F-celcyclusregulerende as. Remming van de CDK4/6–cycline D-activiteit vermindert de fosforylering van het retinoblastoom-eiwit (Rb), waardoor hypofosforyleerd Rb de E2F-afhankelijke transcriptie kan onderdrukken en bijgevolg G1-fase-arrest bevordert en tumorcelproliferatie beperkt8. Hoewel verschillende mechanismen die bijdragen aan resistentie tegen CDK4/6-remmers zijn gekarakteriseerd, verklaren deze niet volledig de verschillen in behandelingsrespons. Deze mechanismen omvatten aberrante activatie van het fosfatidylinositol 3-kinase/proteïnekinase B/mammalian target of rapamycin (PI3K/AKT/mTOR)-pad en verhoogde expressie van cycline–CDK-complexen9,10. Opmerkelijk is dat componenten van het PI3K/AKT/mTOR-pad zelf therapeutische doelen zijn bij gevorderde ziekte11. Gezamenlijk wijzen deze observaties erop dat aanvullende moleculaire determinanten van gevoeligheid voor en resistentie tegen CDK4/6-remmers nog geïdentificeerd moeten worden. De klinische relevantie van predictieve biomarkers wordt geïllustreerd door opkomende biomarker-gestuurde strategieën voor HR-positieve gemetastaseerde borstkanker. Seriële analyse van circulerend tumor-DNA (ctDNA) kan bijvoorbeeld het ontstaan van ESR1-mutaties detecteren tijdens behandeling met CDK4/6-remmers. De PADA-1- en SERENA-6-studies toonden aan dat dergelijke moleculaire detectie een vroege wijziging in de endocriene therapie kan informeren terwijl de CDK4/6-remming wordt gehandhaafd12,13. ESR1-mutaties vormen echter slechts één determinant van de therapeutische respons en kunnen niet alle gevallen van gevoeligheid of resistentie verklaren. Deze beperking heeft een toenemende klinische relevantie omdat patiënten met HR-positieve/HER2-negatieve gemetastaseerde borstkanker die progressie vertonen tijdens behandeling met CDK4/6-remmers nu verschillende daaropvolgende therapeutische opties hebben, waaronder orale selectieve oestrogeenreceptor-degraders, PI3K/AKT-padremmers en antilichaam-drugconjugaten. Het identificeren van aanvullende kandidaat-biomarkers die geassocieerd zijn met differentiële gevoeligheid voor CDK4/6-remmers kan daarom helpen om patiënten die waarschijnlijk meer baat hebben bij deze therapieën te onderscheiden van patiënten die mogelijk een eerdere aanpassing van de behandeling behoeven.
Lange niet-coderende RNA's (lncRNA's) zijn transcripten zonder eiwitcoderend vermogen die deelnemen aan de regulatie van talrijke biologische processen. Verschillende lncRNA's zijn geïmpliceerd in de progressie van kanker en de respons op behandelingen. Bij plaveiselcelcarcinoom van de mond is gerapporteerd dat LOC100506114 proliferatie en migratie bevordert via interactie met de transcriptiefactor RUNX en de daaropvolgende regulatie van de downstream-genexpressie14. Bij borstkanker is HISLA geassocieerd met een verhoogde glycolyse en een toegenomen resistentie tegen apoptose15, terwijl LINC02568 bijdraagt aan endocriene resistentie via regulatie van ESR1 en CA1216. Ondanks de erkende betrokkenheid van lncRNA's bij kankerbiologie, blijft hun relatie met resistentie tegen CDK4/6-remmers onvoldoende gekarakteriseerd. In deze studie werd een geïntegreerde multi-omics- en machine-learningstrategie gebruikt om lncRNA's te identificeren die geassocieerd zijn met de voorspelde gevoeligheid voor ribociclib en palbociclib, waarbij LINC01871 als kandidaat naar voren kwam. Vervolgens hebben we de associatie van LINC01871 met de gevoeligheid voor beide middelen onderzocht en de effecten ervan op de proliferatie van borstkankercellen geëvalueerd met behulp van in vitro- en in vivo-experimentele benaderingen.
Protocol
All procedures involving animals were performed under institutional animal-welfare requirements and received approval from the Animal Ethical and Welfare Committee of Fujian Cancer Hospital & Fujian Medical University Cancer Hospital (Approval No. SQ2021-159-01).
Data acquisition
Bulk transcriptomic profiles were downloaded from TCGA in January 2025 and converted to transcripts per million (TPM) before downstream analysis. Single-cell RNA-sequencing data were obtained from the Gene Expression Omnibus (GEO), using dataset GSE161529.
Drug sensitivity estimation of ribociclib and palbociclib
GDSC2 data were used to train the drug-response prediction model, and TCGA-BRCA transcriptomic profiles were used as the test dataset. Clinical information required for the subgroup analysis was retrieved from the TCGA Pan-Cancer Atlas Clinical with Follow-up dataset. Four clinical variables were considered: ER status (breast_carcinoma_estrogen_receptor_status), PR status (breast_carcinoma_progesterone_receptor_status), HER2 status determined by IHC (lab_proc_her2_neu_immunohistochemistry_receptor_status), and HER2 status determined by FISH (lab_procedure_her2_neu_in_situ_hybrid_outcome_type). A tumor was classified as HR-positive if either ER or PR was annotated as “Positive.” A tumor was classified as HER2-negative when at least one of the HER2 IHC or FISH results was negative and neither test had a positive result. Cases for which HR or HER2 status could not be definitively determined were excluded. Using these criteria, 601 patients were identified as HR-positive/HER2-negative. Among them, 599 had corresponding records in both the Pan-Cancer clinical dataset and the TCGA-BRCA expression matrix and were included in the subgroup analysis. Ribociclib and palbociclib IC₅₀ values were estimated with the oncoPredict R package (version 1.2) using default parameters. Scatter plots generated with ggplot2 were used to display the distribution of predicted IC₅₀ values among patients. Patients within the highest 25% of predicted IC₅₀ values were designated as resistant, whereas those within the lowest 25% were designated as sensitive.
Identification of CDK4/6 inhibitor resistance–related genes
Differential expression between the predicted sensitive and resistant groups was assessed using the limma package, and the resulting gene-expression patterns were displayed as volcano plots with ggplot2. Weighted gene co-expression network analysis (WGCNA) was then conducted with the WGCNA package to identify expression modules associated with resistance to both CDK4/6 inhibitors. Genes shared across the four resulting datasets were identified and illustrated using the VennDiagram package. The intersecting genes were subsequently evaluated by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer packages, with corresponding survival curves generated for visualization. Genes reaching statistical significance in both survival analyses were entered into LASSO regression with the glmnet package to select core prognostic factors. The ability of the selected genes to discriminate predicted drug resistance was then assessed by ROC analysis using pROC, with performance quantified by the area under the ROC curve. AUC values for the different drugs were compared graphically using bar plots generated with ggplot2.
Single-gene analysis of LINC01871
LINC01871 expression was first compared between tumor and normal tissues by differential expression analysis. Its prognostic association across multiple cancer types was subsequently examined by Kaplan–Meier survival analysis and univariate Cox regression using the survival and survminer R packages. Differences in LINC01871 expression among clinicopathological groups were assessed with the Wilcoxon rank-sum test and displayed as boxplots using ggpubr. For the single-cell RNA-sequencing analysis, data preprocessing and downstream analysis were carried out with Seurat. Inter-batch variation was corrected using Harmony with its default parameter settings. Following batch correction, the resulting cell clusters were represented in a UMAP embedding. Cell identities were then assigned automatically with SingleR using reference transcriptomic profiles.
Functional enrichment analysis
Genes showing differential expression between the high- and low-LINC01871 groups were determined with the limma package. In parallel, Pearson correlation analysis was used to identify mRNAs whose expression levels were correlated with LINC01871 expression. GO and KEGG enrichment analyses were subsequently conducted with clusterProfiler. The resulting enrichment profiles were presented as bar and bubble plots generated using ggplot2.
Immune infiltration analysis
Immune cell infiltration was initially characterized using CIBERSORT with the LM22 signature matrix, which was applied to estimate the relative distribution of 22 immune cell populations. Differences in these estimates between the high- and low-LINC01871 expression groups were visualized using ggpubr. Stromal, immune, and ESTIMATE scores were then calculated for individual samples with the estimate package and displayed as violin plots. In addition, single-sample gene set enrichment analysis (ssGSEA) was performed using the GSVA package to estimate the relative abundance of immune cell populations in each sample. Differences in the resulting immune infiltration estimates between the two LINC01871 expression groups were evaluated and visualized with ggpubr.
Cell culture
MDA-MB-231, MCF-10A, and HEK293T cell lines were used in this study. MDA-MB-231 and HEK293T cells were grown in DMEM containing 10% fetal bovine serum, whereas MCF-10A cells were maintained in medium specifically formulated for this cell line. Cultures were kept at 37°C under humidified conditions with 5% CO₂. To establish LINC01871-overexpressing cells, the LINC01871 overexpression construct and lentiviral packaging plasmids were co-transfected into HEK293T cells for lentiviral production. Virus-containing supernatant was subsequently harvested and used to transduce MDA-MB-231 cells. Transduced cells were selected with 1 μg/mL puromycin. Wild-type control and transduced cells were both subjected to puromycin treatment, and selection was terminated after 3–4 days once all wild-type control cells had died.
Reverse transcription quantitative polymerase chain reaction (RT-qPCR)
Cellular RNA was isolated using RNAiso Plus reagent, and RNA concentrations were adjusted to equivalent levels before reverse transcription. Complementary DNA (cDNA) was generated with a reverse transcription kit following the manufacturer’s protocol. RT-qPCR amplification began with denaturation at 95°C for 30 s and was followed by 40 cycles consisting of 95°C for 5 s, 60°C for 30 s, and 72°C for 30 s. Transcript abundance was determined by the 2−ΔΔCt method using GAPDH for normalization. Primer sequences used for the analysis are listed in Supplementary Table 1.
Cell proliferation and cytotoxicity assays
For assessment of drug cytotoxicity, 8,000 cells per well were plated in 96-well plates and allowed to grow for 24 h. The culture medium was subsequently exchanged for fresh medium containing the indicated drug concentrations, followed by a further 24 h of incubation. CCK-8 reagent was then applied, and the plates were maintained in the dark for 2 h before absorbance was recorded at 450 nm. These measurements were used to construct drug dose–response curves and determine IC₅₀ values. For proliferation measurements, cells were prepared at a density of 1,000 cells/mL, and 100 μL of the cell suspension was added to each well of a 96-well plate. CCK-8 measurements were performed at 24 h intervals. At each time point, the reagent was added and the plates were incubated in the dark for 2 h before absorbance was measured at 450 nm to assess cell proliferation.
Colony formation assay
For colony formation experiments, 1,000 cells were plated per well in 6-well plates, with three replicates included for each experimental group. Cells were maintained for 1–2 weeks to permit visible colony development. The medium was then discarded, and the cells were fixed in 4% paraformaldehyde, rinsed with PBS, and subsequently stained with 1% crystal violet.
5-Ethynyl-2′-deoxyuridine incorporation assay
Cells from each experimental group were plated in 12-well plates and maintained overnight. The following day, cells were exposed to the EdU working solution for 2 h. After fixation and permeabilization, EdU labeling was carried out, followed by nuclear counterstaining with Hoechst. Fluorescence microscopy was then used to acquire images for evaluation of EdU incorporation.
Western blot
Cells were lysed in RIPA buffer supplemented with protease and phosphatase inhibitors to obtain total protein. Protein concentrations were quantified by BCA assay. Following addition of loading buffer, the protein samples were denatured at 95°C and resolved by SDS–PAGE before transfer to PVDF membranes. The membranes were blocked at room temperature for 1 h and subsequently incubated with the designated primary antibodies at 4°C overnight (Supplementary Table 2). After three TBST washes, the corresponding secondary antibodies were applied for 45 min at room temperature. Protein signals were detected by enhanced chemiluminescence (ECL) and subsequently imaged. GAPDH or β-actin served as the loading control.
Flow cytometry analysis
For cell-cycle assessment, cells were collected by trypsinization, rinsed with PBS, and fixed overnight in 70% ethanol at 4°C. The fixed cells were washed again with PBS and incubated with a cell-cycle detection reagent before flow cytometric measurement. For apoptosis assessment, harvested cells were washed with PBS and suspended in binding buffer. The cell suspension was stained with Annexin V and propidium iodide (PI) for 10–15 min at room temperature under light-protected conditions. Flow cytometry was subsequently performed to quantify the apoptotic cell populations.
Xenograft mouse models
In vivo experiments were conducted using five-week-old NOD/ShiLtJGpt immunodeficient mice. Animals were maintained in a specific pathogen-free (SPF) facility on a 12 h light/dark schedule, with no more than four animals housed in each cage. Before tumor-cell implantation, mice were anesthetized by inhaled isoflurane. Following confirmation of adequate anesthesia, the animals were allocated to two groups and received abdominal fat-pad injections of either control or LINC01871-overexpressing MDA-MB-231 cells. Tumor growth was designated as the primary outcome. Tumor dimensions were recorded with calipers at intervals of 3–4 days. Tumor volume was determined as V = ( L x W2 ) / 2', where L denotes the longest tumor diameter and W the shortest, with volume expressed in mm3. The study was terminated before any tumor reached a maximum diameter of 1.5 cm or a volume of 2,000 mm3. At the experimental endpoint, mice were anesthetized with isoflurane, and cervical dislocation was performed only after deep anesthesia had been confirmed. Animals were euthanized before the scheduled endpoint if substantial signs of distress were observed, including lethargy, weight loss, hunched posture, or inability to eat or drink. At study completion, tumors were removed and subsequently weighed and imaged.
Statistical analysis
Data analyses were conducted using GraphPad Prism version 10.3.1 and R version 4.3.1. The statistical method applied to each comparison was selected according to the study design and distribution of the corresponding data. As appropriate, analyses included Student’s t-test, paired t-test, Wilcoxon signed-rank test, Mann–Whitney U test, one-way or two-way analysis of variance (ANOVA), Kaplan–Meier analysis with the log-rank test, univariate Cox proportional hazards regression, and Pearson or Spearman correlation analysis. Statistical significance was defined using a two-sided P value <0.05.
Resultaten
LINC01871 is nauw geassocieerd met de gevoeligheid voor ribociclib en palbociclib
Voorspelde IC50 waarden voor ribociclib en palbociclib werden geschat voor patiënten in de TCGA-BRCA cohort met behulp van GDSC2-data en in oplopende volgorde gerangschikt. Patiënten in het laagste kwartiel van de voorspelde IC50waarden werden toegewezen aan de gevoelige groep, terwijl patiënten in het hoogste kwartiel werden toegewezen aan de resistente groep (Figuur 1A,B). Vergelijking van deze groepen identificeerde differentieel tot expressie gebrachte lncRNA's voor elk geneesmiddel (aanvullende Figuur 1A,B). WGCNA identificeerde vervolgens lncRNA-modules die significant geassocieerd waren met de voorspelde gevoeligheid voor ribociclib en palbociclib (Figuur 1C,D; aanvullende Figuur 1C,D). Integratie van de vier resulterende genensets leverde 62 gedeelde lncRNA's op (Figuur 1E), waarvan er 18 significant geassocieerd waren met de prognose in zowel univariate Cox-regressie als Kaplan–Meier overlevingsanalyses. LASSO-regressie werd vervolgens toegepast om deze set verder te verfijnen, wat resulteerde in zes prognostisch relevante lncRNA's: ANKRD44-AS1, AC083837.1, AC242842.1, DBH-AS1, LINC00926 en LINC01871 (Figuur 1F,G; aanvullende Figuur 2A). Hun vermogen om voorspelde drugresistentie te onderscheiden werd vervolgens vergeleken via AUC-analyse. Van de zes kandidaten leverde LINC01871 de hoogste gemiddelde AUC op voor zowel ribociclib als palbociclib (Figuur 1H–J; aanvullende Figuur 2B,C).
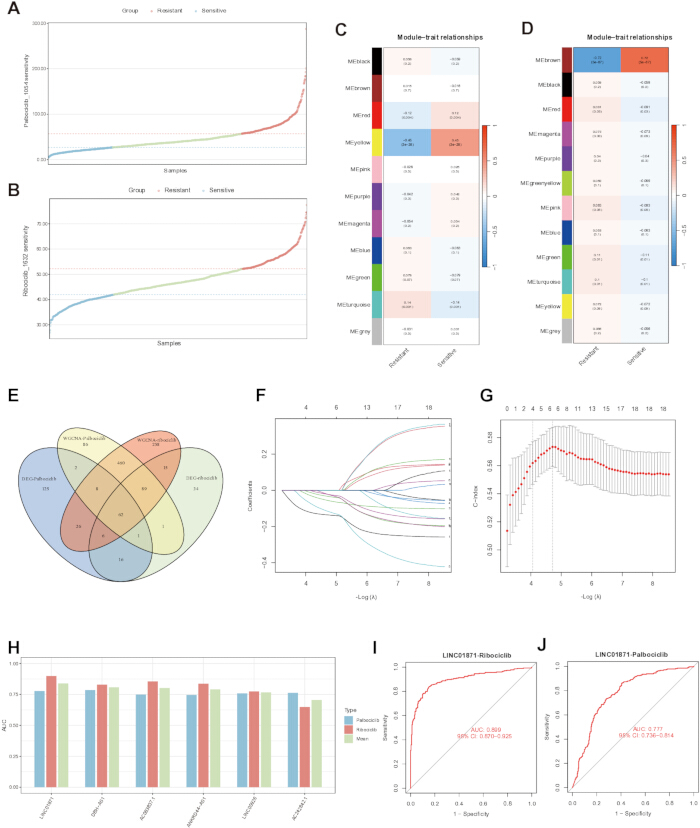
Figuur 1. Identificatie van lange niet-coderende RNA's geassocieerd met de voorspelde gevoeligheid voor ribociclib en palbociclib.
(A,B) Distributie van voorspelde half-maximale inhiberende concentratie (IC50) waarden voor palbociclib (A) en ribociclib (B) in de The Cancer Genome Atlas breast invasive carcinoma (TCGA-BRCA) cohort, geschat met behulp van de Genomics of Drug Sensitivity in Cancer 2 (GDSC2) dataset. (C,D) Weighted gene co-expression network analysis (WGCNA) die module-trait associaties laat zien voor palbociclib (C) en ribociclib (D). (E) Venn-diagram dat de genen illustreert die gedeeld worden tussen de set van differentieel tot expressie gebrachte genen en de WGCNA-afgeleide gensets geassocieerd met de twee geneesmiddelen. (F,G) Least absolute shrinkage and selection operator (LASSO) regressie voor selectie van prognostisch relevante lange niet-coderende RNA's (lncRNA's). (H) Vergelijking van de area under the receiver operating characteristic curve (AUC) waarden voor de zes lncRNA's geselecteerd door LASSO. (I,J) Receiver operating characteristic (ROC) curves die het vermogen van LINC01871 beoordelen om de voorspelde gevoeligheid voor ribociclib (I) en palbociclib (J) te onderscheiden. Klik hier om een grotere versie van deze figuur te bekijken.
Overexpressie van LINC01871 verhoogde de druggevoeligheid in borstkankercellen
Binnen de TCGA-BRCA-cohort was een hogere LINC01871-expressie geassocieerd met lagere voorspelde IC50-waarden voor zowel ribociclib als palbociclib (Figuur 2A,B). Deze relatie werd verder onderzocht in de klinisch relevante HR-positieve/HER2-negatieve subgroep (n = 599). In deze subgroep waren de voorspelde IC50-waarden voor beide middelen significant lager bij patiënten met een hoge LINC01871-expressie dan bij patiënten met een lage expressie. Bovendien was de LINC01871-expressie omgekeerd gecorreleerd met de voorspelde IC50-waarden van ribociclib en palbociclib (Supplementaire Figuur 3A,B). De computationele associatie werd vervolgens experimenteel onderzocht. Cytotoxiciteitsassays toonden een grotere gevoeligheid voor zowel ribociclib als palbociclib aan in borstkankercellen met overexpressie van LINC01871 dan in vectorcontrolecellen (Figuur 2C,D). Flowcytometrie liet een hoger aandeel cellen in de G1-fase en een lager aandeel in de S-fase zien na overexpressie van LINC01871, wat consistent is met een versterkte G1-fase-arrest (Figuur 2E). In colony-formation-assays reduceerden toenemende concentraties van zowel ribociclib als palbociclib progressief de colony-vorming (Figuur 2F,G). Bij equivalente drugconcentraties was het colony-vormend vermogen significant lager in cellen met overexpressie van LINC01871 dan in vectorcontrolecellen. Western blot-analyse onthulde daarnaast lagere niveaus van CDK4, CDK6 en cycline D1, vergezeld door een verminderde RB-fosforylering, in cellen met overexpressie van LINC01871 (Figuur 2H). Deze moleculaire veranderingen waren consistent met de grotere G1-fase-arrest die werd waargenomen na overexpressie van LINC01871.
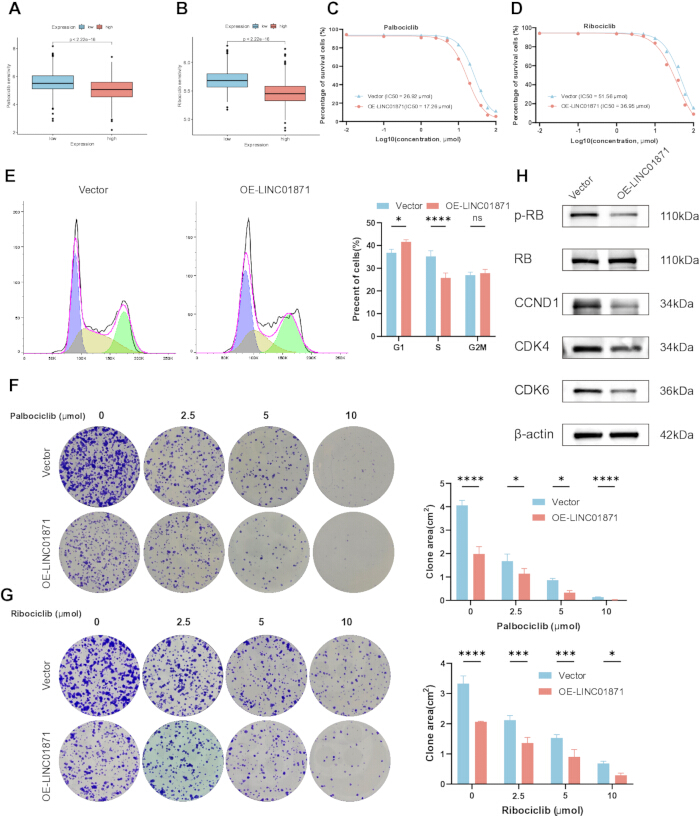
Figuur 2. Associatie van LINC01871-overexpressie met gevoeligheid voor cycline-afhankelijke kinase 4/6-remmers in borstkankercellen. (A,B) Voorspelde gevoeligheid voor palbociclib (A) en ribociclib (B) op basis van lage of hoge LINC01871-expressie. (C,D) Dosis-respons-curves van geneesmiddelen voor palbociclib (C) en ribociclib (D) in vector-controlecellen en cellen met LINC01871-overexpressie, waarbij de overeenkomstige halfmaximale inhiberende concentratie (IC50) waarden in elk paneel zijn aangegeven. (E) Flowcytometrische bepaling van de celcyclusverdeling in vector-controlecellen en cellen met LINC01871-overexpressie. (F,G) Kolonievorming na behandeling met toenemende concentraties palbociclib (F) en ribociclib (G). (H) Western blot-analyse van cycline-afhankelijke kinase 4 (CDK4), cycline-afhankelijke kinase 6 (CDK6), cycline D1 (CCND1), retinoblastoomproteïne (RB) en gefosforyleerd RB (p-RB), waarbij β-actine diende als loading control. OE-LINC01871, LINC01871-overexpressie; ns, niet significant. Alle experimenten zijn onafhankelijk in triplo uitgevoerd. Gegevens worden gepresenteerd als gemiddelde ± SD. IC50 waarden werden bepaald via niet-lineaire regressie. Gegevens over de celcyclusverdeling en kolonievorming werden geanalyseerd met een two-way ANOVA. *P < 0.05, **P < 0.01, ***P < 0.001, en ****P < 0.0001; ns, niet significant. Klik hier om een grotere versie van deze figuur te bekijken.
Patiënten met een hoge LINC01871-expressie neigden naar gunstigere klinische uitkomsten
De prognostische associatie van LINC01871 werd verder onderzocht in de TCGA-BRCA-cohort. Kaplan-Meier-analyses gaven aan dat een hogere LINC01871-expressie over het algemeen geassocieerd was met een langere totale overleving en een langer progressievrije interval (Figuur 3A; Aanvullende Figuur 3C). Vergelijkingen van zowel gepaarde als ongepaarde monsters onthulden tevens een significant lagere LINC01871-expressie in tumorweefsels dan in normaal weefsel (Figuur 3B,C). Vervolgens hebben we de relatie tussen de LINC01871-expressie en clinicopathologische kenmerken onderzocht. Een lagere LINC01871-expressie neigde geassocieerd te zijn met een grotere tumoromvang en werd waargenomen bij patiënten die als overleden waren geregistreerd in vergelijking met patiënten die als levend waren geregistreerd (Figuur 3D,E). Onder patiënten die radiotherapie ontvingen, toonde een subgroepanalyse bovendien significant gunstigere overlevingsuitkomsten bij diegenen met een hoge LINC01871-expressie (Aanvullende Figuur 3D). Er werd vervolgens een prognostisch nomogram ontwikkeld waarin de LINC01871-expressie samen met meerdere klinische kenmerken was opgenomen (Aanvullende Figuur 3E). De kalibratieanalyse toonde een nauwe overeenstemming tussen de overlevingskansen geschat door het nomogram en de waargenomen uitkomsten (Aanvullende Figuur 3F).
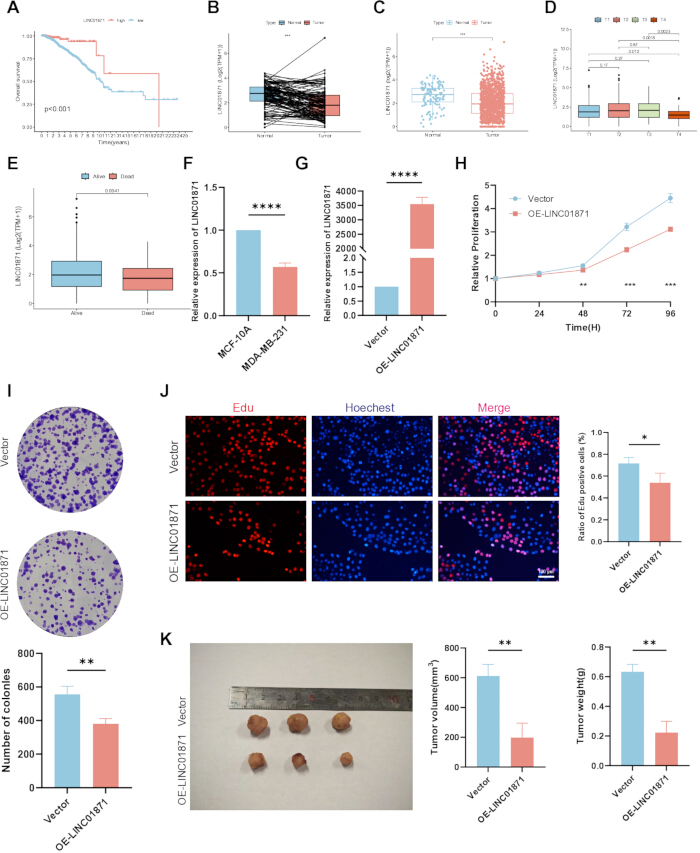
Figuur 3. LINC01871-expressie, prognostische associaties en onderdrukking van borstkankerproliferatie.
(A) Kaplan-Meier-analyse van de algehele overleving, gestratificeerd naar LINC01871-expressie. (B,C) Gepaarde (B) en ongepaarde (C) analyses waarin de LINC01871-expressie tussen normale en tumorweefsels wordt vergeleken. (D,E) LINC01871-expressie in relatie tot tumor-T-categorie (D) and overlevingsstatus (E). (F) Vergelijking van de relatieve LINC01871-expressie tussen MCF-10A- en MDA-MB-231-cellen. (G) Bevestiging van LINC01871-overexpressie in MDA-MB-231-cellen via reverse transcription quantitative polymerase chain reaction. (H–J) Evaluatie van de celproliferatie door middel van een Cell Counting Kit-8 (CCK-8) assay (H), colony formation assay (I) en 5-ethynyl-2′-deoxyuridine (EdU) incorporatie-assay (J). De schaalbalk in paneel J staat voor 100 μm. (K) Uiterlijk, volume en gewicht van xenograft-tumoren in de vector-controle- en LINC01871-overexpressiegroepen. TPM, transcripts per million; OE-LINC01871, LINC01871-overexpressie. De algehele overleving werd geëvalueerd met Kaplan-Meier-analyse met de log-rank test. Gepaarde vergelijkingen tussen tumor- en normaalweefsels werden beoordeeld met de Wilcoxon signed-rank test. Voor de overige vergelijkingen tussen twee groepen werd een ongepaarde Student's t-test of Mann-Whitney U-test gekozen na evaluatie van de normaliteit met de Shapiro-Wilk test. CCK-8-metingen werden geanalyseerd via two-way analysis of variance. In vitro experimenten bestonden uit drie onafhankelijke biologische replica's, terwijl xenograft-experimenten drie muizen per groep bevatten. Gegevens worden gepresenteerd als gemiddelde ± standaarddeviatie. *P < 0,05, **P < 0,01, ***P < 0,001 en ****P < 0,0001; ns, niet significant. Klik hier om een grotere versie van deze figuur te bekijken.
Overexpressie van LINC01871 onderdrukt tumorcelproliferatie en is geassocieerd met verminderde NF-κB-signalering
Het remmende effect van LINC01871 op de proliferatie van tumorcellen werd verder onderzocht met in vitro- en in vivo-modellen. De expressie van LINC01871 was significant hoger in de normale borstepitheelcellijn dan in de borstkankercellijn (Figuur 3F). De succesvolle totstandkoming van het LINC01871-overexpressiemodel werd bevestigd via RT-qPCR, die een sterk verhoogde expressie van LINC01871 liet zien ten opzichte van de vector-controlegroep (Figuur 3G). CCK-8-assays onthulden vervolgens een significant verminderde proliferatiecapaciteit in cellen die LINC01871 overexpresseren (Figuur 3H). In overeenstemming met deze bevinding verminderde LINC01871-overexpressie het vermogen tot kolonievorming (Figuur 3I) en verlaagde het de proportie EdU-positieve cellen (Figuur 3J). In het xenograft-model waren tumoren afgeleid van LINC01871-overexpresserende cellen significant kleiner dan tumoren afgeleid van vector-controlecellen (Figuur 3K).
Om potentiële mechanismen ten grondslag aan deze effecten te onderzoeken, werden functionele verrijkingsanalyses uitgevoerd met gebruik van twee gensets: genen die differentieel tot expressie kwamen tussen de groepen met een hoge en lage LINC01871-expressie en genen die via Pearson-correlatieanalyse werden geïdentificeerd als co-geëxprimeerd met LINC01871. GO-analyse van deze gensets onthulde associaties met verschillende immuungerelateerde functies, waaronder T-celreceptorbinding, binding van het major histocompatibility complex (MHC) proteïnecomplex, positieve regulatie van leukocytenactivatie en immuunreceptoractiviteit (Figuur 4A,C). KEGG-analyse identificeerde op vergelijkbare wijze immuungeassocieerde pathways, waaronder T-celreceptorsignalering en de programmed death-ligand 1 (PD-L1) expressie en programmed cell death protein 1 (PD-1) checkpoint pathway in kanker. Verrijking werd ook waargenomen voor de Janus kinase/signal transducer and activator of transcription (JAK-STAT) en NF-κB signaleringspathways (Figuur 4B,D). Omdat NF-κB-signalering in beide verrijkingsanalyses werd geïdentificeerd, werd de activiteit hiervan verder onderzocht via western blotting. De fosforylering van P65 was aanzienlijk lager in cellen die LINC01871 overexpresseren dan in de controlegroep (Figuur 4E), een bevinding die consistent is met een verminderde activering van de NF-κB pathway. De relatie tussen LINC01871-overexpressie en apoptose werd eveneens geëvalueerd. Western blotting toonde een verhoogde expressie van het pro-apoptotische proteïne Bax en een verlaagde expressie van het anti-apoptotische proteïne Bcl-2 na LINC01871-overexpressie (Figuur 4F). Flowcytometrie onthulde verder een significant groter proportie apoptotische cellen in de LINC01871-overexpressiegroep dan in de vector-controlegroep (Figuur 4G).
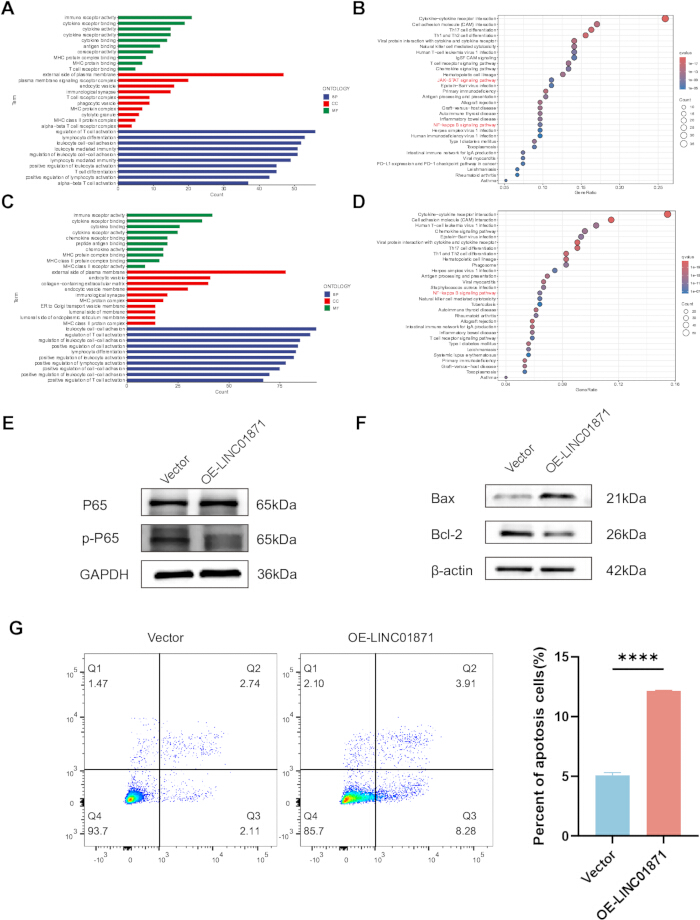
Figuur 4Associatie van LINC01871 met nuclear factor kappa B-signalering en apoptose.
(A,B) Gene Ontology (GO) (A) en Kyoto Encyclopedia of Genes and Genomes (KEGG) (B) verrijkingsanalyses van genen die differentiële expressie vertonen tussen de groepen met een hoge en lage LINC01871-expressie. (C,D) GO (C) en KEGG (D) verrijkingsanalyses van genen die co-geëxprimeerd worden met LINC01871. (E) Western blot-beoordeling van nucleaire factor kappa B (NF-κB) pathway-eiwitten P65 en gefosforyleerd P65 (p-P65), waarbij glyceraldehyde-3-fosfaatdehydrogenase (GAPDH) diende als ladingscontrole. (F) Western blot-analyse van de apoptose-gerelateerde eiwitten B-cell lymphoma 2 (Bcl-2) en Bcl-2-associated X protein (Bax), gebruikmakend van β-actine als ladingscontrole. (G) Flowcytometrische beoordeling en kwantificering van apoptose in vectorcontrolecellen en cellen met overexpressie van LINC01871. Alle in vitro experimenten omvatten drie onafhankelijke biologische replica's. De getoonde western blot-afbeeldingen zijn representatief voor drie onafhankelijke biologische experimenten. Gegevens worden gepresenteerd als gemiddelde ± SD. Vergelijkingen tussen vector-controlecellen en LINC01871-overexpressiecellen werden uitgevoerd met behulp van een ongepaarde Student's Omdat er geen brontekst is verstrekt, kan ik geen vertaling maken. Voer a.u.b. de Engelse tekst in die u vertaald wilt hebben naar het Nederlands.-test of Mann-Whitney U-test na beoordeling van de normaliteit met de Shapiro-Wilk-test. *P < 0,05, **P < 0,01, ***P < 0,001, en ****P < 0,0001; ns, niet significant. Klik hier voor een grotere versie van deze figuur.
Pan-kankeranalyse van LINC01871
Gezien de tumorsuppressieve kenmerken die geassocieerd worden met LINC01871 bij borstkanker, hebben we de analyse uitgebreid naar meerdere kankertypes om de expressie en prognostische associaties ervan te karakteriseren. Differentiële expressie van LINC01871 werd waargenomen bij verschillende maligniteiten naast borstkanker (Figuur 5A). Bij colonadenocarcinoom (COAD), niercelcarcinoom (KIRC), papillair niercelcarcinoom (KIRP), plaveiselcelcarcinoom van de long (LUSC) en schildkliercarcinoom (THCA) werden significante verschillen tussen tumor- en normaalweefsels gedetecteerd in zowel gepaarde als ongepaarde vergelijkingen (Figuur 5B). Overlevingsanalyses identificeerden verder significante prognostische associaties voor LINC01871 bij plaveiselcelcarcinoom van hoofd-halsregio (HNSC), KIRC, laaggradig glioom in de hersenen (LGG), rectumadenocarcinoom (READ), cutaan melanoom van de huid (SKCM), endometriaal carcinoom van het corpus uteri (UCEC), urotheelcarcinoom van de blaas (BLCA), hepatocellulair carcinoom van de lever (LIHC) en prostaatadenocarcinoom (PRAD) (Figuur 5C–E).
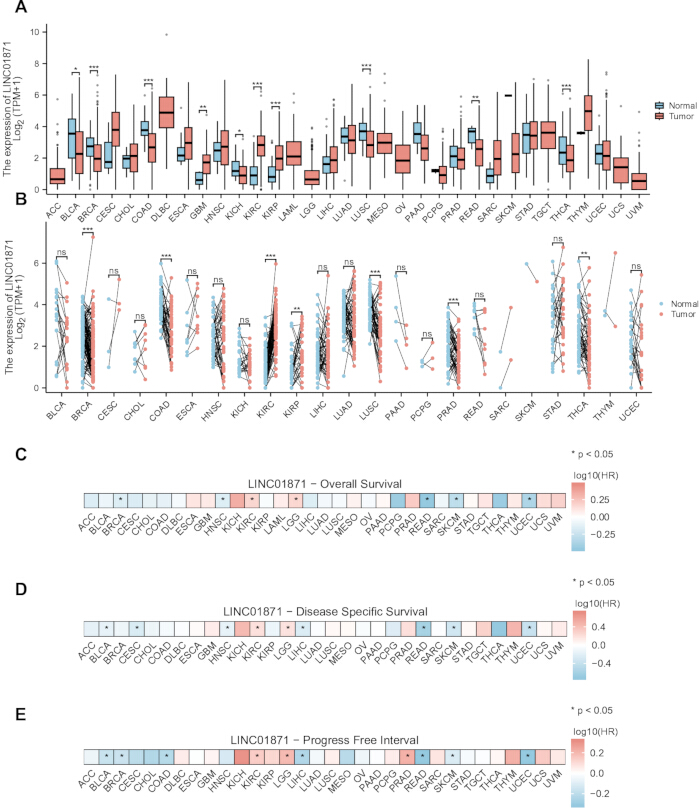
Figuur 5. Pan-cancer expressie- en prognostische analyses van LINC01871.
(A,B) Vergelijking van LINC01871-expressie tussen tumor- en normaalweefsels over meerdere kankertypes met behulp van ongepaarde (A) en gepaarde (B) analyses. (C–E) Prognostische associaties van LINC01871 met log-getransformeerde hazard ratio's voor algehele overleving (C), ziektespecifieke overleving (D) en progressievrije interval (E). HR, hazard ratio; TPM, transcripts per million; ns, niet significant. Afkortingen voor kankertypes zijn gebaseerd op de nomenclatuur van The Cancer Genome Atlas. Ongepaarde tumor-normaaldata werden geëvalueerd met de Mann–Whitney U-test (A), terwijl gepaarde tumor-normaaldata werden geëvalueerd met de Wilcoxon signed-rank test (B). Associaties met algehele overleving, ziektespecifieke overleving en progressievrije interval werden onderzocht via univariate Cox proportional hazards regressie (C–E). *P < 0.05, **P < 0.01, ***P < 0.001, en ****P < 0.0001; ns, niet significant. Klik hier om een grotere versie van deze figuur te bekijken.
Correlatie tussen LINC01871-expressie en infiltratie van immuuncellen
Vervolgens hebben we de cellulaire distributie van LINC01871 gekarakteriseerd met behulp van single-cell RNA-sequencing-gegevens van borstkankermonsters (GSE161529). Na kwaliteitscontrole, correctie van batch-effecten, clustering en annotatie van celtypen omvatten de geïdentificeerde populaties epitheelcellen, CD8⁺ T-cellen, T-cellen, macrofagen, fibroblasten, natural killer (NK)-cellen en B-cellen (Figuur 6A). Onder deze populaties was de expressie van LINC01871 het meest prominent in T-cellen en NK-cellen (Figuur 6B,C). We hebben daarom de relatie tussen LINC01871 en de immuunmicro-omgeving verder onderzocht met behulp van transcriptoomgebaseerde schattingen van infiltratie. CIBERSORT-analyse wees uit dat de groep met een hoge LINC01871-expressie hogere geschatte proporties had van verschillende immuunpopulaties, waaronder CD8⁺ T-cellen, NK-cellen en M1-macrofagen, samen met lagere geschatte proporties van regulatoire T-cellen (Tregs) en M2-macrofagen (Figuur 6D). Op dezelfde manier waren de via ESTIMATE afgeleide immuunscores hoger in monsters met een hoge LINC01871-expressie (Figuur 6E). Analyse via ssGSEA met gebruik van eerder gerapporteerde immuuncel-markergenen leverde grotendeels consistente patronen op (Figuur 6F). Uitbreiding van deze analyse naar verschillende kankertypen toonde significante correlaties aan tussen LINC01871-expressie en de geschatte abundantie van meerdere immuuncelpopulaties (Figuur 6G).
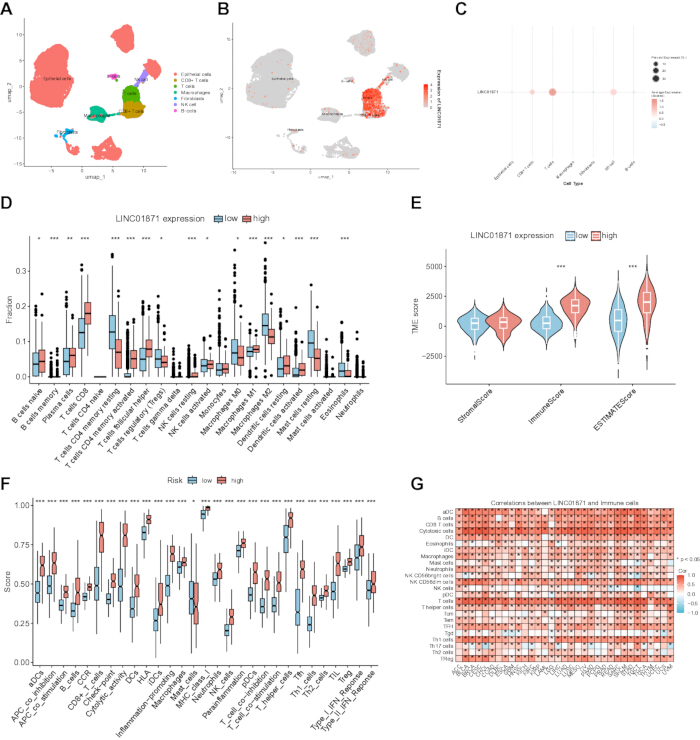
Figuur 6. Single-cell expressie- en immuuninfiltratieanalyses van LINC01871.
(A) Uniform Manifold Approximation and Projection (UMAP) representatie van geannoteerde celpopulaties geïdentificeerd op basis van single-cell RNA-sequencing data. (B) UMAP-feature plot die de distributie van LINC01871-expressie weergeeft tussen de geannoteerde celpopulaties. (C) Dot plot die de proportie LINC01871-expresserende cellen en de geschaalde gemiddelde expressie voor elk celtype weergeeft. (D) Relatieve proporties van 22 immuuncelpopulaties in de groepen met lage en hoge LINC01871-expressie, geschat via Cell-type Identification by Estimating Relative Subsets of RNA Transcripts (CIBERSORT). (E) Stromale, immuun- en tumormicro-omgevingsscores afgeleid met Estimation of STromal and Immune cells in MAlignant Tumour tissues using Expression data (ESTIMATE). (F) Immuun-gerelateerde scores verkregen via single-sample gene set enrichment analysis (ssGSEA) in de groepen met lage en hoge LINC01871-expressie. (G) Pan-cancer associaties tussen LINC01871-expressie en immuuncelinfiltratie geschat met ssGSEA. NK, natural killer; TME, tumormicro-omgeving. Afkortingen voor kankertypen zijn gebaseerd op de nomenclatuur van The Cancer Genome Atlas. Verschillen tussen de groepen met lage en hoge LINC01871-expressie werden geëvalueerd met de Mann–Whitney U test (D–F). Pan-cancer associaties tussen LINC01871-expressie en immuuncelinfiltratie werden geëvalueerd met Spearman correlatieanalyse (G). *P < 0.05, **P < 0.01, ***P < 0.001, en ****P < 0.0001; ns, niet significant. Klik hier om een grotere versie van deze figuur te bekijken.
Beschikbaarheid van gegevens:
De in deze studie geanalyseerde datasets zijn publiekelijk toegankelijk via The Cancer Genome Atlas (TCGA; https://portal.gdc.cancer.gov) en de Gene Expression Omnibus (GEO; https://www.ncbi.nlm.nih.gov/geo/). De gebruikte datasets omvatten de TCGA-BRCA cohort en GSE161529 (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE161529). Aanvullende figuren 1–3 bieden verdere bio-informatische en prognostische analyses. Aanvullende tabel 1 bevat de primersequenties gebruikt voor reverse transcription quantitative polymerase chain reaction (RT-qPCR), en Aanvullende tabel 2 bevat de primaire en secundaire antilichamen gebruikt voor western blot-analyse. De R-scripts gebruikt voor de bio-informatische en statistische analyses zijn opgenomen als Aanvullend bestand 1.
Aanvullende Figuur 1. Identificatie van differentieel tot expressie gebrachte genen en gewogen gen-co-expressienetwerkmodules geassocieerd met de voorspelde gevoeligheid voor CDK4/6-remmers.
(A,B) Volcano plots die de differentieel tot expressie gebrachte genen tonen tussen de voorspelde resistente en voorspelde gevoelige groepen voor ribociclib (A) en palbociclib (B). (C,D) Clusterdendrogrammen gegenereerd door WGCNA die de genclustering en moduletoewijzing tonen voor ribociclib (C) en palbociclib (D). Differentieel tot expressie gebrachte genen werden gedefinieerd als genen met een absolute log2 fold change van ≥0,5 en een gecorrigeerde P-waarde van <0,05. Klik hier om dit bestand te downloaden.
Aanvullende Figuur 2. Prognostische en predictieve prestaties van vijf aanvullende kandidaat lncRNA's.
(A) Kaplan-Meier overlevingsanalyses van vijf aanvullende kandidaat lncRNA's geïdentificeerd via LASSO-regressie. (B,C) Analyses van de receiver operating characteristic-curve die de diagnostische prestaties van deze vijf lncRNA's tonen voor het voorspellen van resistentie tegen ribociclib (B) en palbociclib (C). Overeenkomstige analyses van LINC01871 worden gepresenteerd in Figuur 1 en 3. Klik hier om dit bestand te downloaden.
Aanvullende figuur 3. Prognostische evaluatie van LINC01871 bij borstkanker.
(A) Voorspelde half-maximale inhiberende concentraties (IC50) voor ribociclib en palbociclib in de groepen met een hoge en lage LINC01871-expressie binnen de hormoonreceptor-positieve/human epidermal growth factor receptor 2-negatieve (HR-positieve/HER2-negatieve) subgroep. (B) Spearman-correlatieanalyses tussen LINC01871-expressie en voorspelde IC50-waarden voor ribociclib en palbociclib in de HR-positieve/HER2-negatieve subgroep. (C) Kaplan–Meier overlevingsanalyse van het progressievrije interval (PFI) op basis van LINC01871-expressie. (D) Kaplan–Meier overlevingsanalyse van patiënten die radiotherapie ontvingen, gestratificeerd naar LINC01871-expressie. (E) Nomogram waarin LINC01871-expressie en clinicopathologische kenmerken zijn geïntegreerd voor het voorspellen van de totale overleving in de algemene TCGA-BRCA cohort. (F) Kalibratiecurves die de overeenstemming tussen voorspelde en waargenomen overlevingskansen voor het nomogram evalueren op 1, 3 en 5 jaar. Vergelijkingen in paneel A werden geanalyseerd met de Mann–Whitney U-test, en correlaties in paneel B werden beoordeeld met een Spearman-correlatieanalyse. IC50, half-maximale inhiberende concentratie; PFI, progressievrij interval; HR, hormoonreceptor; HER2, human epidermal growth factor receptor 2. *P < 0,05, **P < 0,01, ***P < 0,001 en ****P < 0,0001; ns, niet significant. Klik hier om dit bestand te downloaden.
Aanvullende Tabel 1. Primersequenties gebruikt voor reverse transcriptie kwantitatieve polymerasekettereactie (RT-qPCR).
Forward- en reverse-primersequenties (5′→3′) gebruikt voor RT-qPCR-analyse van LINC01871 en het endogene referentiegen GAPDH. Klik hier om dit bestand te downloaden.
Aanvullende tabel 2. Primaire en secundaire antilichamen gebruikt voor western blot-analyse.
Primaire en secundaire antilichamen gebruikt voor western blot-analyse, inclusief het doeleiwit of de antilichaamspecifiteit, leverancier, catalogusnummer, gastsoort, werkverdunning en Research Resource Identifier (RRID). Klik hier om dit bestand te downloaden.
Aanvullend bestand 1. R-scripts gebruikt voor bio-informatische en statistische analyses.
Dit aanvullende bestand bevat de R-scripts die zijn gebruikt om de bio-informatische analyses en figuren te genereren die in deze studie worden gepresenteerd, inclusief transcriptoomanalyse, differentiële expressieanalyse, weighted gene co-expression network analysis (WGCNA), least absolute shrinkage and selection operator (LASSO) regressie, overlevingsanalyse, receiver operating characteristic (ROC) analyse, functionele verrijkingsanalyse, immuuninfiltratieanalyse, single-cell RNA-sequencinganalyse en het genereren van figuren. De individuele scripts komen overeen met de hoofd- en aanvullende figuren die in het manuscript worden gepresenteerd. Klik hier om dit bestand te downloaden.
Discussie
Het groeiende inzicht in de kankerbiologie heeft geleid tot de identificatie van nieuwe therapeutische targets en heeft doelgerichte therapieën gevestigd als een belangrijk onderdeel van de kankerbehandeling17. De ontwikkeling van therapieresistentie blijft echter de langetermijneffectiviteit ervan beperken. In deze studie identificeerde de integratie van multi-omics-analyses met machine-learning-benaderingen LINC01871 als een kandidaat die geassocieerd is met de voorspelde gevoeligheid voor ribociclib en palbociclib. Experimentele analyses toonden verder aan dat overexpressie van LINC01871 de gevoeligheid voor beide middelen in vitro verhoogde en de proliferatie van borstkankercellen onderdrukte in celgebaseerde modellen en xenograftmodellen. Deze effecten gingen gepaard met een verminderde activiteit van de NF-κB-route, wat wijst op een potentiële relatie tussen LINC01871 en deze signaalroute. Deze observaties kunnen relevant zijn voor het toenemende gebruik van biomarkers om behandelbeslissingen tijdens CDK4/6-remmertherapie te onderbouwen. Het bewijs ter ondersteuning van LINC01871 verschilt echter substantieel van het bewijs dat beschikbaar is voor gevestigde biomarker-gestuurde benaderingen. Zo is de monitoring van ESR1-mutaties in circulerend tumor-DNA prospectief geëvalueerd als strategie voor het aanpassen van de endocriene behandeling. LINC01871 blijft daarentegen een kandidaat-biomarker en mag nog niet als geschikt worden beschouwd voor klinische besluitvorming. Dit onderscheid is bijzonder belangrijk, aangezien behandelopties na progressie onder CDK4/6-remmertherapie bij HR-positieve/HER2-negatieve metastatische borstkanker nu orale selectieve oestrogeenreceptor-degraders, PI3K/AKT-route-remmers en antilichaam-drug-conjugaten omvatten18,19. Binnen dit evoluerende therapeutische landschap zouden biomarkers die in staat zijn om verschillen in de gevoeligheid voor CDK4/6-remmers te onderscheiden, potentieel kunnen helpen bij de stratificatie van de behandeling. Hoewel onze bevindingen een associatie ondersteunen tussen LINC01871 en de gevoeligheid voor ribociclib en palbociclib, is het bewijs momenteel afgeleid van computationele schattingen van druggevoeligheid samen met in vitro-experimenten. Prospectieve cohorten met gedocumenteerde blootstelling aan CDK4/6-remmers en klinische uitkomsten zullen daarom nodig zijn om te bepalen of LINC01871 voorspellende waarde heeft bij patiënten.
Het therapeutische voordeel van CDK4/6-remmers bij oestrogeenreceptor- en/of progesteronreceptor-positieve borstkanker is aangetoond in meerdere klinische studies4,5,6. Hun potentiële nut bij triple-negatieve borstkanker is daarnaast onderwerp van onderzoek geweest20,21. Zo stelden Yang et al. vast dat gelijktijdige targeting van CDK4/6 en CDK7 de proliferatie van triple-negatieve borstkankercellen remde22. Andere studies hebben moleculaire veranderingen geïdentificeerd die de respons op CDK4/6-remming kunnen beïnvloeden. Er is gerapporteerd dat GPX4-remming de gevoeligheid voor palbociclib verhoogt bij zowel oestrogeenreceptor-positieve als triple-negatieve borstkanker23, terwijl C9orf142 is geassocieerd met resistentie tegen CDK4/6-remmers bij triple-negatieve borstkanker20. Omgekeerd is gemeld dat remming van ACAA1 de gevoeligheid van borstkankercellen voor CDK4/6-remmers versterkt24. Veel van het bestaande werk over moleculaire determinanten van de respons op CDK4/6-remmers heeft zich gericht op proteencoderende genen, waardoor de bijdrage van lncRNA's minder goed gekarakteriseerd is. Onze bevindingen breiden dit gebied uit door LINC01871 te identificeren als een potentieel niet-coderend RNA dat geassocieerd is met de respons op CDK4/6-remmers. Cytotoxiciteits- en colony-formation-assays, samen met flowcytometrische beoordeling en analyse van celcyclus-gerelateerde eiwitten, associeerden LINC01871-overexpressie consistent met een grotere gevoeligheid voor ribociclib en palbociclib. Afzonderlijke proliferatie-assays en het xenograft-model ondersteunden verder een inhiberende associatie tussen LINC01871-overexpressie en borstkankergroei.
Om de mechanismen te onderzoeken die ten grondslag zouden kunnen liggen aan deze waarnemingen, hebben we de functionele profielen geanalyseerd van genen die differentieel tot expressie kwamen tussen de groepen met hoge en lage LINC01871-waarden en genen die co-expressie vertoonden met LINC01871. GO- en KEGG-analyses koppelden beide genensets aan immuungerelateerde processen en NF-κB-signalering. Deze bevinding is relevant voor de regulatie van de celcyclus, aangezien eerder is gerapporteerd dat NF-κB-signalering de expressie van cycline D verhoogt en daarmee de progressie van de celcyclus faciliteert25,26. Zhou et al. toonden verder aan dat NF-κB kan interageren met de CDK6-promoter en de CDK6-transcriptie kan stimuleren27. Ook crosstalk tussen NF-κB en het PI3K/AKT/mTOR-pad is beschreven28, waarbij dit laatste pad betrokken is bij resistentie tegen CDK4/6-remmers11. Samen bieden deze waarnemingen een rationaal voor het onderzoeken van de NF-κB-activiteit in de context van LINC01871. In overeenstemming met de verrijkingsresultaten vertoonden cellen die LINC01871 overexpressieerden een lagere P65-fosforylering. Desalniettemin leggen deze gegevens een associatie vast in plaats van een direct regulerend mechanisme, en het is nog onduidelijk hoe LINC01871 de NF-κB-signalering beïnvloedt.
De immuunmicro-omgeving vormt een andere potentiële factor die bijdraagt aan de respons op CDK4/6-remmers. γδ T-cellen zijn bijvoorbeeld gerapporteerd om resistentie te faciliteren via effecten die worden gemedieerd door CX3CR1⁺ macrofagen29. Luo et al. observeerden een grotere infiltratie van CD8⁺ T-cellen en NK-cellen in tumoren van patiënten die op latere tijdstippen resistentie ontwikkelden tegen CDK4/6-remmers30. Onze single-cell analyse toonde aan dat de expressie van LINC01871 prominenter was in T-cellen en NK-cellen dan in epitheelcellen. Complementaire transcriptoomgebaseerde analyses associeerden een hogere LINC01871-expressie met een grotere geschatte infiltratie van CD8⁺ T-cellen, M1-macrofagen en NK-cellen, en met een lagere geschatte infiltratie van M2-macrofagen en Tregs. CD8⁺ T-cellen, M1-macrofagen en NK-cellen worden geassocieerd met antitumor immuunactiviteit, terwijl M2-macrofagen zijn gekoppeld aan tumorbevorderende functies31,32,33,34. Samen genomen suggereren onze resultaten dat een hogere LINC01871-expressie geassocieerd kan zijn met een immuunactievere tumormicro-omgeving. Deze interpretatie blijft echter voorlopig, omdat de schattingen van de immuuncellen zijn afgeleid uit transcriptomische profielen in plaats van direct zijn gemeten, en functionele studies noodzakelijk zullen zijn om vast te stellen of LINC01871 een rol speelt bij het vormgeven van de immuunmicro-omgeving.
Bij het interpreteren van deze bevindingen moeten enkele beperkingen worden erkend. Ten eerste werd LINC01871 geïdentificeerd via een integratieve multi-omics-analyse waarin de respons op geneesmiddelen computationeel werd afgeleid in plaats van verkregen van patiënten die CDK4/6-remmers ontvingen. Hoewel directe in vitro-experimenten een grotere gevoeligheid voor palbociclib en ribociclib lieten zien na overexpressie van LINC01871, vestigen deze resultaten de voorspellende waarde bij patiënten niet vast. Onafhankelijke cohorten met gedocumenteerde blootstelling aan CDK4/6-remmers en klinische responsgegevens zullen daarom nodig zijn om LINC01871 als voorspellende biomarker te evalueren. Ten tweede werd de ontdekkingsanalyse aanvankelijk uitgevoerd over het volledige TCGA-BRCA-cohort, dat klinisch heterogene borstkankersubtypen omvat. De associatie tussen LINC01871 en de voorspelde gevoeligheid voor geneesmiddelen werd ook waargenomen binnen de HR-positieve/HER2-negatieve subgroep; bevestiging in klinisch behandelde HR-positieve/HER2-negatieve populaties blijft echter noodzakelijk. Ten derde waren onze analyses van de respons op geneesmiddelen beperkt tot palbociclib en ribociclib, omdat overeenkomstige responsgegevens voor abemaciclib niet beschikbaar waren in de GDSC2-dataset die voor deze studie is gebruikt. Of de waargenomen associatie zich uitstrekt tot abemaciclib blijft daarom onbekend. Ten vierde, ondanks de tumor-suppressieve effecten die werden waargenomen in de cel-gebaseerde en xenograft-experimenten, is de moleculaire link tussen LINC01871 en NF-κB-signalering niet vastgesteld. Verminderde P65-fosforylering ging gepaard met LINC01871-overexpressie, maar het mechanisme dat verantwoordelijk is voor deze associatie vereist verder onderzoek. Op dezelfde manier waren de immuun-gerelateerde observaties voornamelijk afgeleid van transcriptoom-gebaseerde computationele analyses en moeten deze worden geïnterpreteerd als associaties in plaats van bewijs dat LINC01871 direct de immuunmicro-omgeving van de tumor reguleert. Ten slotte omvat resistentie tegen CDK4/6-remmers meerdere biologische processen, en het is onwaarschijnlijk dat LINC01871 volledig verantwoordelijk is voor de complexiteit van de behandelingsrespons. Verder onderzoek zou daarom subtype-specifieke cohorten, evaluatie van abemaciclib, experimentele validatie van de immuun-gerelateerde associaties, mechanistische studies naar de relatie tussen LINC01871 en NF-κB-signalering, en prospectieve klinische evaluatie moeten bevatten om te bepalen of LINC01871 nuttig is als voorspellende biomarker.
Openbaarmakingen
Belangenverstrengeling:
De auteurs verklaren dat zij geen concurrerende belangen hebben.
Dankbetuigingen
Dit onderzoek werd ondersteund door de Natural Science Foundation of Fujian Province (Grant No. 2022J011056). De auteurs danken The Cancer Genome Atlas (TCGA) en de Gene Expression Omnibus (GEO) voor het ter beschikking stellen van de openbaar toegankelijke datasets die in deze studie zijn gebruikt.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 25 G injectienaald | Beyotime | FS802-30pcs | Wegwerpinjectienaalden gebruikt voor de mondspreider en optionele voorafgaande versoepeling van het parodontiumligament |
| 4% paraformaldehyde-oplossing | Solarbio | P1110 | 4% paraformaldehyde-oplossing gebruikt voor fixatie van het specimen |
| 75% ethanol | Ouse Medical Devices Store | N/A | 75% medische ethanol gebruikt voor oppervlakte-desinfectie |
| C57BL/6 muizen | Charles River | 213 | 8 weken oude mannelijke C57BL/6 muizen met een gewicht van 22–29 g |
| Carprofen | Solarbio | C5350 | Postoperatief analgeticum subcutaan toegediend bij 5 mg/kg |
| Wattenbollen | Ouning Medical Devices | N/A | Steriele wattenbollen gebruikt voor orale reiniging en hemostase |
| CTAn v1.18.4.0+ | SkyScan | N/A | Software gebruikt voor μCT-beeldanalyse |
| DataViewer v1.5.6.2 | SkyScan | N/A | Software gebruikt voor het bekijken en exporteren van gereconstrueerde μCT-beelden |
| Vingerbeschermers | LeSu Office | MEKU-1/2/3B | Vingerbeschermers gebruikt ter bescherming van de duim tijdens extractie |
| Schuimplaat | Dongguan Lijianglong Industrial Co., Ltd. | N/A | Schuimplaat gebruikt als operatie- en fixatieplatform |
| Geldieet | ReadyDietech | J10001 | Postoperatief dieet aangeboden op de bodem van de kooi gedurende 3 dagen, indien gebruikt |
| GraphPad Prism v10.1.2 | GraphPad | RRID: SCR_002798 | Software gebruikt voor statistische analyse en het genereren van grafieken |
| Hoofdlamp | Bazhou Pengen Protective Equipment Factory | N/A | Hoofdlamp gebruikt om het operatieveld te verlichten |
| Warmtemat | Shijiazhuang Jianuan Electrical Appliances Co., Ltd. | N/A | Warmtemat voorverwarmd tot ongeveer 38 °C voor postoperatief herstel |
| Hydroxyapatiet-phantom | QRM | QRM-70127 | Kalibratie-phantom gebruikt om CT-attenuatiewaarden om te zetten in botmineraaldichtheid |
| Vergrotingsapparaat | Olympus Corporation | SZX10 | Apparaat gebruikt om de getande pincetpunten en de extractieholte onder vergroting te inspecteren |
| Mondkapje | Senlun Medical Devices Specialty Store | N/A | Chirurgisch mondkapje |
| Micro-computertomografie-scanner | Bruker SkyScan | SkyScan 1276 | μCT-scanner gebruikt bij 80 kV, 500 μA en een voxelresolutie van 10 μm |
| Mimics Research v21.0 | Materialise | RRID: SCR_015802 | Software gebruikt voor driedimensionale reconstructie |
| Pentobarbitalnatrium | Sigma-Aldrich | P3761 | Pentobarbitalnatriumzout gebruikt als 1% anesthetische oplossing |
| Fosfaatgebufferde zoutoplossing | Solarbio | P1010 | 0,01 M fosfaatgebufferde zoutpoeder, pH 7,2–7,4 |
| Povidon-jodium antiseptische oplossing | Belkon Pharmacy Flagship Store | N/A | Povidon-jodiumoplossing gebruikt voor abdominale desinfectie |
| Elastiekjes | Foshan Puli Rubber Products Factory | N/A | Elastiekjes gebruikt voor de assemblage van de mondspreider |
| Zoutoplossing | Thermo Fisher | BR0053G | Zouttabletten gebruikt voor het bereiden van de oplossing voor orale reiniging |
| Standaard korrelvoer | Jiangsu Xietong Pharmaceutical and Biotechnology Engineering Co., Ltd. | XTC01WC-001 | Standaard voer gebruikt voor routinehuisvesting en geweekt voor postoperatieve voeding |
| Stoomsterilisator | Institutional facility | N/A | Apparatuur gebruikt om de getande pincetten en zoutoplossing te steriliseren |
| Steriele wattenstaafjes | Kangbailai Medical Devices Store | N/A | Steriele wattenstaafjes voor eenmalig gebruik |
| Steriele handschoenen | Senlun Medical Devices Specialty Store | N/A | Steriele latex handschoenen |
| Steriel vliesdoek | Shandong Xinhua Infection Control Supplies Hangzhou Store | N/A | Steriel vliesdoek gebruikt om het operatievlak en de warmtemat te bedekken |
| Steriele operatiemuts | Senlun Medical Devices Specialty Store | N/A | Steriele operatiemuts |
| OK-kleding | Senlun Medical Devices Specialty Store | N/A | Schone OK-kleding gedragen tijdens de procedure |
| Tape | Thermo Fisher | 15947 | Hechtpleister gebruikt om de ledematen van de muis te fixeren |
| Getande oftalmische pincet | Beyotime | FS229 | Getande oftalmische pincet gebruikt als tandheelkundige pincet |
| Veterinaire oogzalf | Dechra Veterinary Products | 143-16 | Oogzalf aangebracht na anesthesie om uitdroging van het hoornvlies te voorkomen |
Referenties
- Bray F, et al. Global cancer statistics 2022: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2024;74(3):229-63.
- Xiong X, et al. Breast cancer: Pathogenesis and treatments. Signal Transduct Target Ther. 2025;10(1):49.
- Ye F, et al. Advancements in clinical aspects of targeted therapy and immunotherapy in breast cancer. Mol Cancer. 2023;22(1):105.
- Johnston SRD, et al. Abemaciclib plus endocrine therapy for hormone receptor-positive, HER2-negative, node-positive, high-risk early breast cancer (monarchE): Results from a preplanned interim analysis of a randomised, open-label, phase 3 trial. Lancet Oncol. 2023;24(1):77-90.
- Slamon D, et al. Ribociclib plus endocrine therapy in early breast cancer. N Engl J Med. 2024;390(12):1080-91.
- Finn RS, et al. The cyclin-dependent kinase 4/6 inhibitor palbociclib in combination with letrozole versus letrozole alone as first-line treatment of oestrogen receptor-positive, HER2-negative, advanced breast cancer (PALOMA-1/TRIO-18): A randomised phase 2 study. Lancet Oncol. 2015;16(1):25-35.
- Morrison L, Loibl S, Turner NC. The CDK4/6 inhibitor revolution-a game-changing era for breast cancer treatment. Nat Rev Clin Oncol. 2024;21(2):89-105.
- Guo Z, et al. Cyclin-dependent kinase 4 and 6 inhibitors in breast cancer treatment. Oncogene. 2025;44(17):1135-52.
- Vora SR, et al. CDK4/6 inhibitors sensitize PIK3CA-mutant breast cancer to PI3K inhibitors. Cancer Cell. 2014;26(1):136-49.
- Foffano L, et al. Cyclin-dependent kinase 4 and 6 inhibitors (CDK4/6i): Mechanisms of resistance and where to find them. Breast. 2025;79:103863.
- Hao C, et al. PI3K/AKT/mTOR inhibitors for hormone receptor-positive advanced breast cancer. Cancer Treat Rev. 2025;132:102861.
- Bidard FC, et al. Switch to fulvestrant and palbociclib versus no switch in advanced breast cancer with rising ESR1 mutation during aromatase inhibitor and palbociclib therapy (PADA-1): A randomised, open-label, multicentre, phase 3 trial. Lancet Oncol. 2022;23(11):1367-77.
- Bidard FC, et al. First-line camizestrant for emerging ESR1-mutated advanced breast cancer. N Engl J Med. 2025;393(6):569-80.
- Zhang D, et al. Cancer-associated fibroblasts promote tumor progression by lncRNA-mediated RUNX2/GDF10 signaling in oral squamous cell carcinoma. Mol Oncol. 2022;16(3):780-94.
- Chen F, et al. Extracellular vesicle-packaged HIF-1α-stabilizing lncRNA from tumour-associated macrophages regulates aerobic glycolysis of breast cancer cells. Nat Cell Biol. 2019;21(4):498-510.
- Chen X, et al. Estrogen-induced lncRNA LINC02568 promotes estrogen receptor-positive breast cancer development and drug resistance through both in trans and in cis mechanisms. Adv Sci (Weinh). 2023;10(25):e2206663.
- Huang R, Zhou PK. DNA damage repair: Historical perspectives, mechanistic pathways and clinical translation for targeted cancer therapy. Signal Transduct Target Ther. 2021;6(1):254.
- Güren AK, et al. Post-CDK4/6 inhibitor treatment landscape in metastatic hormone receptor-positive breast cancer: A narrative review. Expert Rev Anticancer Ther. 2026;26(4):425-35.
- Güren AK, et al. Efficacy and safety of sacituzumab govitecan in hormone receptor-positive metastatic breast cancer: A systematic review and meta-analysis. J Oncol Pharm Pract. 2026. doi:10.1177/10781552261462434.
- Liao L, et al. C9orf142 transcriptionally activates MTBP to drive progression and resistance to CDK4/6 inhibitors in triple-negative breast cancer. Clin Transl Med. 2023;13(11):e1480.
- Zhu X, et al. Efficacy and mechanism of the combination of PARP and CDK4/6 inhibitors in the treatment of triple-negative breast cancer. J Exp Clin Cancer Res. 2021;40(1):122.
- Yang Y, et al. Dual inhibition of CDK4/6 and CDK7 suppresses triple-negative breast cancer progression via epigenetic modulation of SREBP1-regulated cholesterol metabolism. Adv Sci (Weinh). 2025;12(5):e2413103.
- Herrera-Abreu MT, et al. Inhibition of GPX4 enhances CDK4/6 inhibitor and endocrine therapy activity in breast cancer. Nat Commun. 2024;15(1):9550.
- Peng WT, et al. Inhibition of ACAA1 restrains proliferation and potentiates the response to CDK4/6 inhibitors in triple-negative breast cancer. Cancer Res. 2023;83(10):1711-24.
- Joyce D, et al. NF-κB and cell-cycle regulation: The cyclin connection. Cytokine Growth Factor Rev. 2001;12(1):73-90.
- Iwanaga R, et al. Activation of the cyclin D2 and CDK6 genes through NF-κB is critical for cell-cycle progression induced by HTLV-I Tax. Oncogene. 2008;27(42):5635-42.
- Zhou B, et al. Bortezomib suppresses self-renewal and leukemogenesis of leukemia stem cells by NF-κB-dependent inhibition of CDK6 in MLL-rearranged myeloid leukemia. J Cell Mol Med. 2021;25(6):3124-35.
- Yu M, et al. Baicalein increases cisplatin sensitivity of A549 lung adenocarcinoma cells via the PI3K/AKT/NF-κB pathway. Biomed Pharmacother. 2017;90:677-85.
- Petroni G, et al. IL-17A-secreting γδ T cells promote resistance to CDK4/CDK6 inhibitors in HR-positive/HER2-negative breast cancer via CX3CR1-positive macrophages. Nat Cancer. 2025;6(10):1656-75.
- Luo L, et al. Single-cell RNA sequencing identifies molecular biomarkers predicting late progression to CDK4/6 inhibition in patients with HR-positive/HER2-negative metastatic breast cancer. Mol Cancer. 2025;24(1):48.
- Komuro H, et al. Single-cell sequencing of CD8-positive tumor-infiltrating lymphocytes revealed the nature of exhausted T cells recognizing neoantigens and cancer/testis antigens in non-small cell lung cancer. J Immunother Cancer. 2023;11(8):e007180.
- Rafei H, et al. CREM is a regulatory checkpoint of CAR and IL-15 signalling in NK cells. Nature. 2025;643(8073):1076-86.
- Van Elsas MJ, et al. Immunotherapy-activated T cells recruit and skew late-stage activated M1-like macrophages that are critical for therapeutic efficacy. Cancer Cell. 2024;42(6):1032-50.e1010.
- Yang J, et al. STK11 coordinates IL-4 signaling with metabolic reprogramming to control M2 macrophage polarization and antitumor immunity. Sci Adv. 2025;11(39):eadx5495.