Dit protocol beschrijft een muismodel van longletsel geassocieerd met coronavirusziekte 2019, geïnduceerd door gecombineerde intranasale toediening van severe acute respiratory syndrome coronavirus 2 en lipopolysaccharide. Het model maakt onderzoek mogelijk naar pulmonale inflammatoire responsen, verstoorde type I interferon-responsen en potentiële therapeutische interventies.
Methodenartikel
Een muismodel van longschade geassocieerd met coronavirusziekte 2019, geïnduceerd door severe acute respiratory syndrome coronavirus 2 en lipopolysaccharide
49 weergaven
⸱
11 september 2026
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Ondanks de wijdverspreide implementatie van vaccinaties en antivirale therapieën blijft een SARS-CoV-2-infectie aanzienlijke morbiditeit en mortaliteit veroorzaken onder kwetsbare populaties, wat de dringende behoefte onderstreept aan betrouwbare experimentele modellen om de pathogenese van COVID-19 te onderzoeken, de mechanismen van geneesmiddelwerking te verduidelijken en potentiële therapeutische strategieën te evalueren. Een SARS-CoV-2-infectie kan ernstige longschade veroorzaken, gekenmerkt door overmatige ontstekingsreacties en een aangetaste type I interferon (IFN-I)-gemedieerde antivirale immuniteit; huidige diermodellen schieten echter tekort in het nabootsen van de ontregelde immuun-inflammatoire reacties die geassocieerd worden met COVID-19. Een SARS-CoV-2- en LPS-geïnduceerd muismodel voor COVID-19-geassocieerde longschade is ontwikkeld om belangrijke immunopathologische kenmerken van COVID-19 te reproduceren. Dit model induceert prominente pathologische kenmerken in longweefsel, waaronder infiltratie van ontstekingscellen, destructie van de alveolaire structuur en verhoogde expressie van pro-inflammatoire cytokinen, vergezeld door aangetaste IFN-I-responsen. Deze studie biedt een gedetailleerde beschrijving van de procedures die zijn gebruikt om het SARS-CoV-2- en LPS-geïnduceerde muismodel voor longschade te vestigen en karakteriseert het model systematisch via analyses van histopathologische veranderingen in de longen, virale load, inflammatoire cytokinen en IFN-I-niveaus. Dit model biedt een experimenteel platform voor het onderzoeken van de immuun-inflammatoire mechanismen die ten grondslag liggen aan COVID-19-geassocieerde longschade en de processen die betrokken zijn bij longweefselherstel, terwijl het tevens een basis biedt voor het evalueren van therapeutische strategieën die gericht zijn op het verlichten van immuun-inflammatoire ontregeling en het bevorderen van het herstel van de longfunctie.
Inleiding
Sinds het opduiken eind 2019 heeft SARS-CoV-2 geleid tot een wereldwijde uitdaging voor de volksgezondheid, en de voortdurende virale evolutie vormt nog steeds een uitdaging voor bestaande vaccins en therapeutische strategieën1,2,3. Daarom is verder onderzoek naar COVID-19-gerelateerd longletsel essentieel voor het verduidelijken van ziektemechanismen en het verbeteren van therapeutische strategieën.
SARS-CoV-2-infectie kan ernstige longschade veroorzaken en kan zelfs voortschrijden tot acute respiratory distress syndrome (ARDS) en een syndroom van multiple orgaandysfunctie4,5. Een groeiende hoeveelheid bewijs suggereert dat de pathogenese van COVID-19-geassocieerde longschade zeer complex is, waarbij de dysregulatie van immuun- en inflammatoire reacties een kenmerkend aspect is6,7,8,9. Enerzijds kan een SARS-CoV-2-infectie een overmatige inflammatoire respons induceren, wat leidt tot de massale afgifte van pro-inflammatoire cytokinen zoals interleukine-6 (IL-6), interleukine-1β (IL-1β) en tumornecrosefactor-α (TNF-α), waardoor een zogenaamde "cytokinestorm" wordt in gang gezet10,11, wat wordt beschouwd als een belangrijke drijver van longschade en ziekteprogressie. Anderzijds kan SARS-CoV-2 in de vroege fase van de infectie de IFN-I-respons van de gastheer via meerdere mechanismen onderdrukken, wat resulteert in een verminderde IFN-I-gemedieerde antivirale immuniteit12,13,14. Bijgevolg wordt een vertraagde interferonrespons, vergezeld van verhoogde spiegels van pro-inflammatoire cytokinen, beschouwd als een kenmerkend aspect van COVID-196,15.
Huidig beschikbare diermodellen voor COVID-19 vertrouwen grotendeels op hACE2-transgene muizen, op muizen aangepaste virusstammen of andere soorten zoals fretten en niet-menselijke primaten16,17. Conventionele SARS-CoV-2-infectiemodellen bij muizen slagen echter vaak er niet in om de hyperinflammatoire kenmerken van COVID-19 volledig te reproduceren18,19,20. LPS, een TLR4-agonist, induceert krachtige ontstekingsreacties en wordt veelvuldig gebruikt in modellen voor acute longschade21. Daarom is het in deze studie beschreven model, geïnduceerd door SARS-CoV-2 en LPS, ontworpen voor onderzoek gericht op COVID-19-geassocieerde longschade, in het bijzonder de mechanismen die ten grondslag liggen aan overmatige inflammatoire activatie en verslechterde antivirale immuunresponsen. In vergelijking met modellen met enkel SARS-CoV-2 benadrukt deze benadering immuun-inflammatoire kenmerken, terwijl de context van de virale infectie behouden blijft. Dit model heeft aanzienlijk potentieel voor het onderzoeken van immuun-inflammatoire mechanismen, in plaats van het modelleren van virale transmissie of het volledige natuurlijke verloop van een SARS-CoV-2-infectie.
Dit protocol beschrijft de procedurele totstandkoming van een SARS-CoV-2- en LPS-geïnduceerd muismodel van COVID-19-geassocieerde longschade. Gezien de beperkingen van bestaande modellen bij het reproduceren van de immuun-inflammatoire dysregulatie geassocieerd met COVID-19, biedt deze benadering een praktisch platform voor het bestuderen van ziektemechanismen en het evalueren van potentiële therapeutische strategieën. Het model werd systematisch geëvalueerd aan de hand van longhistopathologie, virale load, inflammatoire cytokines en IFN-I-responsen.
Protocol
Deze studie realiseerde een muismodel van longschade geassocieerd met COVID-19 via intranasale instillatie van SARS-CoV-2 en LPS, waardoor een stabiel en kosteneffectief alternatief voor transgene muismodellen werd geboden. Het experimentele protocol is goedgekeurd door het Sichuan Center for Disease Control and Prevention en heeft goedkeuring gekregen van de ethische commissie voor dierproeven [Sichuan CDC (Animal Ethics) Approval No. 005 (2025)]. Alle procedures zijn uitgevoerd in strikte overeenstemming met de relevante richtlijnen en biosafety-regelgeving.
Gedetailleerde informatie over de primaire reagentia en apparatuur wordt gegeven in de Tabel met materialen.
1. Ontwerp van het studieprotocol
- Wijs BALB/c-muizen willekeurig toe aan de controlegroep of de modelgroep.
- Dien op dag 0 SARS-CoV-2 intranasaal toe aan de muizen in de modelgroep.
- Dien op dag 2 LPS intranasaal toe aan de muizen in de modelgroep.
- Dien op de overeenkomstige tijdstippen een gelijk volume normale zoutoplossing intranasaal toe aan de controlemuizen.
- Euthanaseer alle muizen op dag 3 na de SARS-CoV-2-infectie en verzamel longweefsel voor modelvalidatie.
OPMERKING: De experimentele workflow is geïllustreerd in Figuur 1A.
2. Voorbereiding
- Voorbereiding van de dieren
- Gebruik specifieke pathogeenvrije (SPF) vrouwelijke BALB/c-muizen in de leeftijd van 6–8 maanden en met een gewicht van ongeveer 25–30 g.
- Wijs de muizen met behulp van een randomisatietabel willekeurig toe aan een controlegroep of een modelgroep, met vier dieren per groep.
- Huis de muizen onder standaard laboratoriumomstandigheden met vrije toegang tot voedsel en water.
OPMERKING: Eerdere studies hebben aangetoond dat oudere muizen gevoeliger zijn voor intranasale SARS-CoV-2-infectie dan jongere muizen18,22. Daarom zijn in deze studie oudere BALB/c-muizen geselecteerd om de vestiging van een model voor SARS-CoV-2-geassocieerd longletsel te vergemakkelijken. - Inoculeer elke muis intranasaal met 100 µL virale suspensie, wat overeenkomt met een uiteindelijke infectieuze dosis van 4,5 x 10⁵ TCID₅₀ per muis.
OPMERKING: SARS-CoV-2 werd verstrekt door het Sichuan Center for Disease Control and Prevention. De stam die in deze studie is gebruikt, was de SARS-CoV-2 Omicron-variant, met een titer van de virale voorraad van 4,5 x 10⁶ TCID₅₀/mL.
WAARSCHUWING: Aangezien SARS-CoV-2 een zeer pathogeen micro-organisme is, moeten alle virusgerelateerde procedures worden uitgevoerd in een faciliteit voor dierbiologische veiligheid niveau 3 (ABSL-3). Optimaliseer de infectieuze dosis op basis van preliminaire experimenten bij het gebruik van verschillende virale varianten of diermodellen.
- Bereiding van de werkvoorraad
- Bereiding van de LPS-voorraadoplossing: Weeg 3 mg LPS-poeder af en los dit op in 1 mL normale zoutoplossing. Meng voorzichtig of vortex continu tot het volledig is opgelost om een voorraadoplossing met een concentratie van 3 mg/mL te verkrijgen. Verdun de voorraadoplossing vóór toediening verder met normale zoutoplossing tot de gewenste werkconcentratie, afgestemd op het lichaamsgewicht van de muizen.
- Bereiding van de anesthetische oplossing: Reconstitueer het poeder met het in de Zoletil-verpakking meegeleverde steriele water voor injectie om een oplossing te bereiden met de vereiste massa-volumeratio voor dienstig gebruik.
- Bereiding van de virale werkoplossing: Ontdooi 1 mL SARS-CoV-2 virale suspensie langzaam op ijs in een veiligheidskabinet vóór gebruik.
OPMERKING: Volg de respectievelijke instructies van de fabrikanten bij het bereiden en gebruiken van alle werkoplossingen.
3. Intranasale toediening bij muizen
- Weeg elke muis voor de toediening en noteer het lichaamsgewicht.
- Bereken de doses Zoletil en LPS op basis van het lichaamsgewicht van elke muis.
- Bereid de overeenkomstige werkoplossingen voor en trek de benodigde volumes op met een geschikte spuit voor de daaropvolgende toediening.
- Fixatie van de muis: Pak de muis voorzichtig bij de nekvel door de duim en wijsvinger van de linkerhand te gebruiken en de huid achter de oren en nek vast te houden.
- Plaats het dier in de handpalm terwijl de ringvinger en pink worden gebruikt om de rug en staart te fixeren. Positioneer de muis in rugligging met het abdomen volledig blootgesteld en het lichaam gestabiliseerd.
- Desinfectie: Desinfecteer de abdominale injectieplaats met 75% ethanol met behulp van een steriel wattenstaafje.
- Anesthesie: Steek de naald van de spuit met Zoletil (25mg/kg) ongeveer 0,5 cm lateraal van de middenlijn van het onderabdomen in. Voer de naald onder een hoek van 45° in de peritoneale holte tot een diepte van ongeveer 2–3 mm nadat de huid is gepenetreerd. Aspireer om te controleren op de afwezigheid van bloed en dien vervolgens langzaam het anestheticum toe.
OPMERKING: Optimaliseer de dosis anestheticum op basis vanstudiereeks-experimenten om adequate anesthesie te waarborgen en mortaliteit te minimaliseren. Vermijd herhaalde punctie om weefselschade te beperken. - Bevestiging van anesthesie: Bevestig de anesthetische toestand door te observeren of de ademhaling stabiel en regelmatig is, zonder tekenen van dyspneu of respiratoire nood.
- Intranasale instillatie van SARS-CoV-2 (dag 0): Dien 100 µL van de SARS-CoV-2 virale suspensie (50 µL per neusgat) langzaam en druppelgewijs toe op de externe nares met een micropipet of spuit tijdens een stabiele ademhalingscyclus en aan het begin van de inspiratie.
- Wissel van neusgat om een gelijkmatige inhalatie te vergemakkelijken. Behandel controlemuizen met een gelijk volume normale zoutoplossing volgens dezelfde procedure.
OPMERKING: Dien de oplossing druppelgewijs toe en zorg ervoor dat elke druppel in de neusholte wordt geïnhaleerd voordat de volgende wordt aangebracht, totdat het doelvvolume is bereikt. - Afhandeling na toediening: Houd de kop van de muis gedurende ongeveer 30–60 s in een licht verhoogde positie na de intranasale instillatie om de afgifte van de oplossing in de lagere luchtwegen te vergemakkelijken. Plaats de muizen terug in hun kooien zodra er tekenen van herstel van de anesthesie worden waargenomen en monitor ze tot het volledige bewustzijn is hersteld.
- Registratie en monitoring: Noteer het toedieningsvolume en het identificatienummer van elke muis. Monitor de dieren continu gedurende de experimentele periode op overlevingsstatus en algemene fysiologische conditie.
- Intranasale instillatie van LPS (dag 2): Dien op dag 2 na de SARS-CoV-2 infectie LPS toe aan de muizen. Voer de intranasale toediening van LPS (5 mg/kg) uit volgens hetzelfde protocol als gebruikt voor de toediening van SARS-CoV-2. Dien een gelijk volume normale zoutoplossing toe aan controlemuizen volgens dezelfde procedure.
OPMERKING: Bij deze stap werden LPS en normale zoutoplossing toegediend volgens dezelfde procedure als de SARS-CoV-2 inoculatie, inclusief anesthesie en intranasale toediening.
4. Muisdissectie en verzameling van longweefsel
- Euthanaseer de muizen op dag 3 na SARS-CoV-2 infectie voor weefselverzameling. Anestheseer de dieren eerst en offer ze daarna via cervicale dislocatie. Behandel de controlemuizen volgens dezelfde procedure.
OPMERKING: Zie Aanvullend Bestand 1 voor gedetailleerde procedures met betrekking tot cervicale dislocatie. - Zet de geuthanaseerde muis in rugligging vast op een dissectieplank met de abdominale en thoracale regio's volledig blootgesteld. Bevochtig de vacht op de buik met 75% ethanol om contaminatie te minimaliseren.
- Gebruik steriele scharen om het sternum voorzichtig langs de bilaterale costale randen door te snijden en open de thoraxholte geleidelijk. Gebruik een pincet om weefsels voorzichtig terug te trekken en dissekeer de longen stapsgewijs van de omliggende thoracale structuren, waarbij mechanische beschadiging van het longweefsel tot een minimum wordt beperkt.
OPMERKING: Controleer de oriëntatie van de schaarpunten zorgvuldig tijdens het snijden om beschadiging van het hart, de longen en de belangrijkste vasculaire structuren te voorkomen. - Plaats de uitgenomen longweefsels onmiddellijk in vooraf gekoelde PBS of normale zoutoplossing en spoel ze voorzichtig 2–3 keer om restbloed en debris te verwijderen. Dep overtollige oppervlaktevloeistof zorgvuldig weg met pluisvrij filterpapier en vermijd compressie om structurele schade aan het weefsel te voorkomen.
- Weeg de bewerkte longweefsels onmiddellijk met een elektronische balans en noteer de metingen.
- Exciteer de rechter caudale lob en fixeer deze onmiddellijk in 4% paraformaldehyde met een volume 10 keer dat van het weefsel voor daaropvolgende histopathologische analyse.
WAARSCHUWING: Paraformaldehyde is toxisch; hanteer dit in overeenstemming met de institutionele veiligheidsrichtlijnen. - Verzamel de resterende longweefsels, verdeel deze in aliquots in cryovials, vries ze snel in vloeibare stikstof in en bewaar ze bij −80 °C voor conservering. Reserveer de rechter craniale lob, de rechter middenlob en de accessoire lob voor detectie van SARS-CoV-2 virale load en pro-inflammatoire cytokinen, en reserveer de linkerlong voor ELISA-analyse.
WAARSCHUWING: Vloeibare stikstof is extreem koud; draag geschikte cryogene handschoenen en een veiligheidsbril bij het hanteren om koude brandwonden of bevriezing te voorkomen. - Reinig en steriliseer alle instrumenten grondig volgens standaardprocedures na voltooiing van de dissectie. Voer dierlijke karkassen en biologisch afval af in overeenstemming met de institutionele en wettelijke richtlijnen voor dierproeven.
5. Hematoxylin-eosin (HE)-kleuring23
- Fixeer verse longweefsels in 4% paraformaldehyde bij kamertemperatuur gedurende 24 h.
OPMERKING: Controleer de fixatietijd zorgvuldig. Vermijd onvoldoende fixatie, wat kan leiden tot onvolledige weefselbewaring, en verlengde fixatie, wat overmatige eiwitcrosslinking kan veroorzaken en de kleuringskwaliteit kan beïnvloeden. - Verwerk de gefixeerde weefsels met een automatische weefselprocessor voor gegradeerde dehydratatie, inklearing en paraffine-infiltratie.
OPMERKING: Het protocol voor de automatische weefselprocessor staat beschreven in Supplementary File 2. - Plaats de met paraffine geïnfiltreerde weefsels in inbeddingsvormpjes. Voeg gesmolten paraffine toe en oriënteer het weefsel zorgvuldig.
- Plaats de vormpjes op een koude plaat voor stolling. Verwijder de paraffineblokjes uit de vormpjes nadat ze volledig zijn uitgehard.
- Monteer de paraffineblokjes in een microtoom en stel het snijoppervlak zo in dat dit parallel aan het mes staat. Neem seriële coupes met een dikte van ongeveer 3–5 µm.
- Breng de coupes onmiddellijk over naar een waterbad van ongeveer 45 °C voor flotatie om volledige expansie mogelijk te maken.
- Neem de coupes op met objectglazen door één uiteinde van het glas verticaal in het water te dippen en gebruik een pincet om een goede hechting van de coupes op het oppervlak van het objectglas te bevorderen.
- Plaats de objectglazen in een objectglaasdroger van 65 °C gedurende ongeveer 1 h om de weefselhechting te verbeteren.
OPMERKING: Pas de droogtijd aan op basis van het weefseltype, de dikte van de coupes en de condities van de apparatuur. Vermijd oververhitting om weefselschade te voorkomen. - Voer HE-kleuring uit op de gedroogde coupes met behulp van een automatische kleurmachine.
OPMERKING: Het protocol voor de automatische kleurmachine staat beschreven in Supplementary File 3. - Neem de gekleurde coupes uit de machine en laat ze aan de lucht drogen. Breng een druppel neutraal monteermedium aan en dek de objectglazen af met een dekglas. Bekijk de coupes onder een lichtmicroscoop nadat het monteermedium is gestold.
6. Expressie van de SARS-CoV-2 virale load en pro-inflammatoire cytokinen in longweefsel
- Homogenisatie van longweefsel
- Bereid RNase-vrije homogenisatiebuisjes voor door 4–5 roestvrijstalen kogels (3 mm diameter) en 900 µL voorkoeld lysisbuffer als homogenisatiemedium toe te voegen.
OPMERKING: Pas het volume lysisbuffer aan op basis van het weefselgewicht, gewoonlijk in een verhouding van ongeveer 9 mL per 1 g weefsel. - Weeg ongeveer 50 mg longweefsel af, snipper het weefsel fijn en breng het over in het homogenisatiebuisje.
- Homogeniseer het weefsel met een weefselgrinder (60 Hz, 60 s, gedurende 2–3 cycli met intervallen van 10 s tussen de cycli).
OPMERKING: Optimaliseer de homogenisatieparameters op basis van het instrument en het weefseltype. - Inspecteer het monster na homogenisatie om volledige disruptie te garanderen. Herhaal het homogenisatieproces als er zichtbare weefselfragmenten overblijven totdat een uniform lysaat is verkregen.
- Bereid RNase-vrije homogenisatiebuisjes voor door 4–5 roestvrijstalen kogels (3 mm diameter) en 900 µL voorkoeld lysisbuffer als homogenisatiemedium toe te voegen.
- Kolomgebaseerde extractie van totaal RNA uit longweefsel
OPMERKING: Extraheer totaal RNA uit longweefsel met een kolomgebaseerde purificatiemethode volgens de instructies van de fabrikant. Voer alternatieve RNA-extractiemethoden uit volgens de betreffende producthandleidingen indien van toepassing.- Breng het homogenaat over in een nieuw RNase-vrij microcentrifugebuisje van 2 mL. Voeg 100 µL gDNA Eliminator-oplossing toe. Sluit de dop van het buisje stevig en schud krachtig gedurende 15–20 s.
- Open de dop kortstondig, voeg 180 µL chloroform toe en vortex grondig gedurende 15 s.
WAARSCHUWING: Chloroform is vluchtig en toxisch; hanteer dit in een goed geventileerde ruimte of in een chemische zuurkast en draag passende persoonlijke beschermingsmiddelen om inademing en huidcontact te vermijden. - Incubeer het monster 2 min bij kamertemperatuur en centrifugeer vervolgens 15 min bij 12.000 x g bij 4 °C.
- Breng de bovenste waterige fase voorzichtig over naar een nieuw buisje. Voeg een gelijk volume 70% ethanol toe en meng grondig door te vortexen.
OPMERKING: Vermijd het verstoren van de interfase en de organische laag bij het verzamelen van de waterige fase om de RNA-zuiverheid te garanderen. Ga direct na toevoeging van 70% ethanol over naar de volgende stap zonder te centrifugeren. - Breng het mengsel over naar een spincolumn en centrifugeer 15 s bij 8.000 x g. Gooi het doorgefilterde volume weg.
- Voeg 700 µL wasbuffer toe aan de spincolumn en centrifugeer 15 s bij 8.000 x g. Gooi het doorgefilterde volume weg.
- Voeg 500 µL wasbuffer toe aan de spincolumn en centrifugeer 15 s bij 8.000 x g. Herhaal deze wasstap eenmaal.
- Plaats de spincolumn in een nieuw opvangbuisje en centrifugeer 1 min bij 12.000 x g om resterende wasbuffer te verwijderen.
- Plaats de spincolumn in een nieuw RNase-vrij microcentrifugebuisje van 1,5 mL. Voeg 30 µL RNase-vrij water direct in het centrum van het membraan toe en centrifugeer 1 min bij 8.000 x g om het RNA te elueren.
OPMERKING: Pas het volume RNase-vrij water aan tussen 30–50 µL afhankelijk van de downstream toepassingen. Gebruik een lager elutievolume wanneer een hogere RNA-concentratie vereist is.
- Detectie van SARS-CoV-2 virale load via reverse transcriptie digitale PCR (RT-dPCR)
OPMERKING: Een one-step RT-dPCR-assay werd gebruikt voor absolute kwantificering van SARS-CoV-2 RNA. Specifieke primer-probe sets gericht op het nucleocapside (N) gen werden gebruikt om het aantal kopieën viraal RNA te bepalen.- Ontdooi de RNA-monsters en reagentia op ijs.
- Bereid het RT-dPCR-reactiemengsel voor volgens de instructies van de fabrikant.
- Combineer 20 µL RT-dPCR-reactiemengsel met 20 µL RNA-template. Vortex het mengsel kort, centrifugeer het met een korte spin en bewaar het op ijs.
- Breng het reactiemengsel van 40 µL aan in de wells van de digitale PCR-chip en verzegel de chip volgens het instrumentprotocol.
- Voer de amplificatie uit met de volgende thermische cycli-condities: 50 °C gedurende 40 min (1 cyclus), 95 °C gedurende 2 min (1 cyclus), gevolgd door 40 cycli van 95 °C gedurende 15 s en 57 °C gedurende 60 s. Stel de detectiekanalen in op GREEN (250 ms) en RED (150 ms).
- Detectie van inflammatoire cytokinenexpressie via reverse transcriptie kwantitatieve PCR (RT-qPCR)
- Bepaal de RNA-concentratie en -zuiverheid met een UV-spectrofotometer.
- Gebruik 1.000 ng totaal RNA per reactie voor reverse transcriptie om complementair DNA (cDNA) te synthetiseren volgens de instructies van de fabrikant.
- Voer RT-qPCR uit met 100 ng cDNA per reactie als template met een SYBR Green PCR master mix en genspecifieke primers. Gebruik de volgende cycli-condities: 95 °C gedurende 2 min, gevolgd door 40 cycli van 95 °C gedurende 5 s en 60 °C gedurende 10 s. De primersequenties staan vermeld in Tabel 1.
OPMERKING: Optimaliseer de reactiecondities op basis van de gebruikte specifieke reagentia en instrumenten, en volg de betreffende instructies van de fabrikant. - Gebruik GAPDH als intern referentiegen en bereken de relatieve genexpressieniveaus met de 2−ΔΔCt methode.
7. Detectie van pro-inflammatoire cytokines in longweefsel via enzyme-linked immunosorbent assay (ELISA)24
OPMERKING: Gebruik ELISA-kits volgens de specifieke protocollen die door de verschillende fabrikanten worden verstrekt. Volg de bijbehorende instructies van de fabrikant strikt op bij het gebruik van kits van alternatieve leveranciers.
- Homogeniseer longweefsel zoals hierboven beschreven. Gebruik PBS of een ELISA-specifieke weefsellysebuffer als homogenisatiemedium.
- Centrifugeer de gehomogeniseerde monsters (bijv. 12.000 x g, 4 °C, 10 min) en verzamel het supernatant voor verdere analyse.
- Laat de ELISA-kit 30 min voor gebruik op kamertemperatuur acclimatiseren. Haal de benodigde microplate-strips uit de aluminiumfolieverpakking.
- Bereid standaarden, monsterputjes en blanco putjes voor volgens de instructies van de fabrikant. Voeg 50 µL standaarden toe aan de standaardputjes en 10 µL monster plus 40 µL monsterverdunningsbuffer aan de monsterputjes. Voer voor elke standaard en elk monster twee technische replica's uit.
- Voeg 100 µL mierikswortelperoxidase (HRP)-geconjugeerd detectieantilichaam toe aan elk standaard- en monsterputje, behalve aan de blanco putjes. Segel de plaat met adhesieve folie en incubeer bij 37 °C gedurende 60 min.
- Gooi na incubatie de vloeistof uit elk putje weg en klop de plaat voorzichtig op absorberend papier om restvloeistof te verwijderen.
- Voeg wasbuffer toe aan elk putje, laat dit 1 min staan en gooi vervolgens de buffer weg. Dep de plaat droog. Herhaal deze wasstap in totaal vijf keer.
- Voeg opeenvolgend 50 µL substraatoplossing A en 50 µL substraatoplossing B toe aan elk putje. Meng de plaat voorzichtig en incubeer bij 37 °C in het donker gedurende 15 min om kleurontwikkeling mogelijk te maken.
- Stop de reactie door 50 µL stopoplossing aan elk putje toe te voegen. Meet de optische dichtheid (OD) binnen 10 min bij 450 nm met een microplate-reader.
- Genereer een standaardcurve door standaardconcentraties (x-as) uit te zetten tegen de OD-waarden (y-as) en fit de curve. Bereken de concentraties van de doelcytokinen in de monsters door de OD-waarden in de vergelijking van de standaardcurve in te vullen en vermenigvuldig dit met de overeenkomstige verdunningsfactoren.
- Bepaal de totale eiwitconcentratie in longweefsel met behulp van een BCA-eiwitassaykit. Normaliseer de uiteindelijke cytokineniveaus naar het totale eiwitgehalte en druk de resultaten uit als de hoeveelheid doelcytokine per milligram totaal eiwit (bijv. pg/mg eiwit).
Resultaten
Modelvalidatie werd uitgevoerd door pulmonale histopathologische veranderingen, de SARS-CoV-2 virale load en de spiegels van pro-inflammatoire cytokines en type I interferonen in zowel de controlegroep als de modelgroep te beoordelen.
Statistische analyse
Gegevens worden weergegeven als gemiddelde ± standaardfout (SE). Een ongepaarde Student's t-toets werd gebruikt voor vergelijkingen tussen de model- en controlegroepen. Deze toets is gekozen omdat deze geschikt is voor het vergelijken van de gemiddelden van continue variabelen tussen twee onafhankelijke groepen. In deze studie werden muizen onafhankelijk en willekeurig toegewezen aan de twee groepen, waardoor voldaan werd aan de aanname van onafhankelijkheid van de steekproeven. Een p-waarde < 0,05 werd beschouwd als statistisch significant.
Veranderingen in het lichaamsgewicht en de longindex van muizen
Zoals getoond in Figuur 1B, was het lichaamsgewicht van de muizen in de modelgroep na infectie significant afgenomen vergeleken met de basiswaarden vóór de modellering, met een statistisch significant verschil (p < 0,05). Zoals getoond in Figuur 1C, was de longindex van de muizen in de modelgroep significant verhoogd vergeleken met die van de controlegroep (p < 0,01), wat consistent is met de kenmerkende eigenschappen van longschade. Er werd geen mortaliteit waargenomen gedurende de experimentele periode en alle muizen overleefden tot aan het eindpunt.
Histopathologische veranderingen in longweefsel en SARS-CoV-2 virale load van muizen
Figuur 2 presenteert de histopathologische veranderingen en de virale load in het longweefsel van muizen uit beide groepen. HE-kleuring toonde aan dat de controlegroep een intacte longarchitectuur vertoonde, terwijl de modelgroep aanzienlijke pulmonale pathologische veranderingen vertoonde, waaronder verdikking van de alveolaire septa, infiltratie van ontstekingscellen en verstoring van de alveolaire structuur (Figuur 2A). Kwantitatieve analyse bevestigde verder dat zowel de longschadescore als de alveolaire ontstekingsscore significant verhoogd waren in de modelgroep vergeleken met de controlegroep (p < 0,001), wat de succesvolle inductie van longschade en ontstekingsreacties aantoont (Figuur 2B,C).
Daarnaast werd een aanzienlijk niveau van SARS-CoV-2 RNA-expressie gedetecteerd in longweefsels van de modelgroep. Op dag 3 na infectie bereikte de gemiddelde virale load in longweefsel 5,5 x 10⁸ kopieën/g (Figuur 2D), wat wijst op een succesvolle virale replicatie en een aanhoudende hoge aanwezigheid in de long.
Veranderingen in pro-inflammatoire cytokinen en IFN-I in longweefsel van muizen
Figuur 3 illustreert de veranderingen in inflammatoire cytokinen en IFN-I in longweefsel van muizen. De resultaten laten zien dat, vergeleken met de controlegroep, de mRNA-expressie en eiwitniveaus van IL-6, IL-1β en TNF-α in het longweefsel van de modelgroep significant verhoogd waren (p < 0,05) (Figuur 3A–F), wat wijst op een duidelijke activering van de ontstekingsreactie. In tegenstelling hiermee toonden ELISA-resultaten aan dat de spiegels van IFN-α en IFN-β in het longweefsel van de modelgroep significant verlaagd waren vergeleken met die in de controlegroep (p < 0,001) (Figuur 3G,H), wat suggereert dat de antivirale immuunrespons wordt onderdrukt.
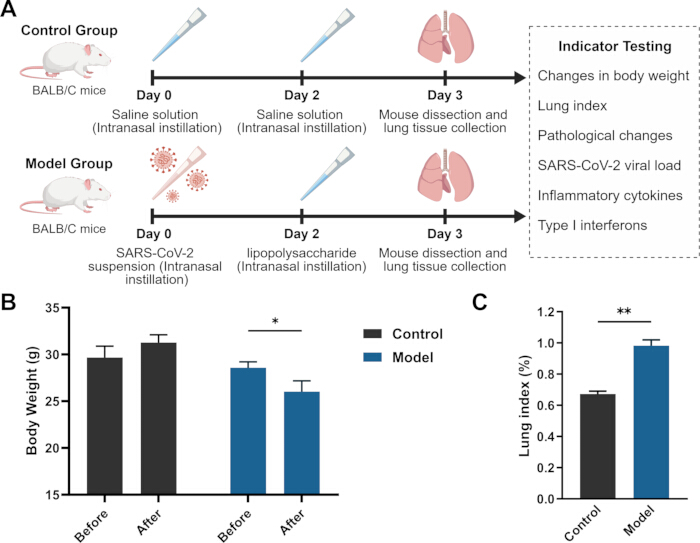
Figuur 1: Experimenteel stroomschema en veranderingen in het lichaamsgewicht en de longindex van muizen. (A) Experimenteel stroomschema. (B) Veranderingen in het lichaamsgewicht van muizen. (C) Veranderingen in de longindex van muizen. Gegevens worden weergegeven als gemiddelde ± SE per groep. De t-toets van Student werd gebruikt om statistische verschillen tussen groepen te beoordelen. *p < 0,05; **p < 0,01; ***p < 0,001. Figuur 1A is gemaakt met BioGDP.com25. Klik hier om een grotere versie van deze figuur te bekijken.
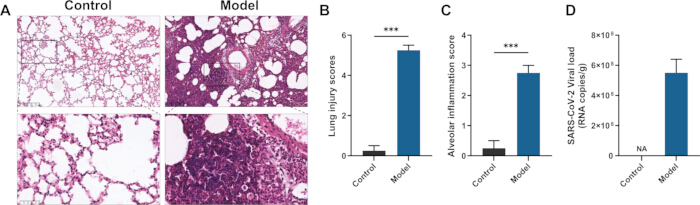
Figuur 2: Histopathologische veranderingen en SARS-CoV-2 virale load in longweefsel van muizen. (A) HE-kleuring van longweefsel van muizen. (B) Score voor longletsel (Smith-score). (C) Score voor alveolaire ontsteking (Szapiel-score). (D) SARS-CoV-2 virale load in longweefsel. Gegevens zijn weergegeven als gemiddelde ± SE voor elke groep. De t-toets van Student werd gebruikt om statistische verschillen tussen groepen te beoordelen. *p < 0,05; **p < 0,01; ***p < 0,001. Klik hier om een grotere versie van deze figuur te bekijken.
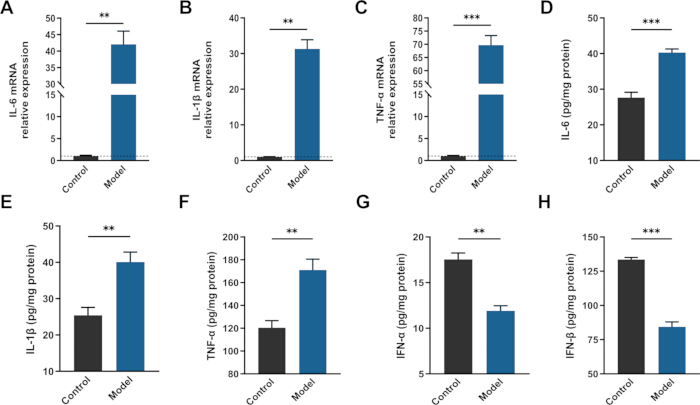
Figuur 3: Veranderingen in pro-inflammatoire cytokinen en IFN-I in longweefsel van muizen. (A–C) Relatieve mRNA-expressie van de pro-inflammatoire cytokinen IL-6, IL-1β en TNF-α in longweefsel van muizen. (D–F) Eiwitniveaus van IL-6, IL-1β en TNF-α in longweefsel van muizen. (G–H) Niveaus van IFN-α en IFN-β in longweefsel van muizen. Gegevens worden weergegeven als gemiddelde ± SE voor elke groep. De t-test van Student werd gebruikt om statistische verschillen tussen groepen te beoordelen. *p < 0,05; **p < 0,01; ***p < 0,001. Klik hier om een grotere versie van deze figuur te bekijken.
| Primer | Voorwaartse sequentie (5' naar 3') | Omgekeerde sequentie (5' naar 3') |
| IL-6 | CTTCTTGGGACTGATGCTGGTGAC | AGGTCTGTTGGGAGTGGTATCCTC |
| IL-1β | TCGCAGCAGCACATCAACAAGAG | AGGTCCACGGGAAAGACACAGG |
| TNF-α | GCCTCTTCTCATTCCTGCTTGTGG | GTGGTTTGTGAGTGTGAGGGTCTG |
| GAPDH | GGCAAATTCAACGGCACAGTCAAG | TCGCTCCTGGAAGATGGTGATGG |
Tabel 1: Primer-sequenties gebruikt in deze studie. Forward- en reverse primer-sequenties (5′ naar 3′) voor de doelgenen en interne referentiegenen zijn opgesomd.
Aanvullend bestand 1 Klik hier om dit bestand te downloaden.
Aanvullend bestand 2 Klik hier om dit bestand te downloaden.
Aanvullend bestand 3 Klik hier om dit bestand te downloaden.
Discussie
Deze studie stelde een muismodel vast voor longschade geassocieerd met COVID-19 via intranasale instillatie van SARS-CoV-2 en LPS. De resultaten toonden aan dat intranasale co-toediening van SARS-CoV-2 en LPS een robuuste inflammatoire respons induceert, vergezeld van onderdrukking van IFN-I-signalering. Muizen in de modelgroep vertoonden een significant gewichtsverlies en een verhoogde longindex, wat duidt op systemische uitputting en verergerde longschade. HE-kleuring bevestigde verder dat de modelgroep typische diffuse longschade vertoonde, gekenmerkt door verstoring van de alveolaire architectuur en uitgebreide infiltratie van inflammatoire cellen. Bovendien vertoonden longweefsels van de modelgroep, vergeleken met de controlegroep, een significant verhoogde expressie van belangrijke pro-inflammatoire cytokinen, waaronder IL-6, IL-1β en TNF-α, terwijl de niveaus van IFN-α en IFN-β duidelijk waren afgenomen. Deze bevindingen suggereren een toestand van immuunonevenwicht, gekenmerkt door excessieve activatie van pro-inflammatoire responsen vergezeld van onderdrukte antivirale immuniteit, wat de potentiële waarde van dit model bij het nabootsen van de immunopathologische kenmerken van de ziekte verder ondersteunt.
SARS-CoV-2-infectie wordt beschouwd als een centrale drijvende factor bij de ontwikkeling van COVID-19-geassocieerde orgaanschade26,27. In deze studie werd een hoge virale load gedetecteerd in het longweefsel van modelmuizen, vergezeld door uitgesproken diffuse longschade en infiltratie van ontstekingscellen, wat suggereert dat virale infectie een belangrijke trigger kan zijn voor de pulmonale ontstekingsrespons. In overeenstemming met eerdere rapporten kan SARS-CoV-2-infectie pulmonale pathologische veranderingen en immuunactivatie induceren28; conventionele SARS-CoV-2-infectiemodellen in muizen vertonen echter vaak beperkte ontstekingsreacties en reproduceren mogelijk niet volledig het hyperinflammatoire fenotype dat bij COVID-19-patiënten wordt waargenomen18,19,20. Daarom kan aanvullende stimulatie van de aangeboren immuniteit vereist zijn om de mechanismen ten grondslag aan de immuun-inflammatoire dysregulatie geassocieerd met de ziekte beter te onderzoeken. LPS, een prototypische activator van de aangeboren immuniteit, bindt aan Toll-like receptor 4 (TLR4) en triggert zowel MyD88-afhankelijke als TRIF-afhankelijke signaleringspaden, waardoor belangrijke inflammatoire transcriptionele programma's zoals NF-κB worden geactiveerd en de expressie van meerdere pro-inflammatoire cytokinen wordt geïnduceerd29. Eerdere studies hebben ook aangetoond dat LPS-stimulatie, zowel alleen als in combinatie met SARS-CoV-2-gerelateerde componenten, ontstekingsreacties kan versterken en kan bijdragen aan fenotypes die lijken op acute longschade, wat de rationale ondersteunt om LPS als inflammatoire stimulus op te nemen in COVID-19-gerelateerd onderzoek30,31,32. In de huidige studie werden significant verhoogde spiegels van IL-6, IL-1β en TNF-α waargenomen in longweefsels van de modelgroep, wat suggereert dat LPS functioneert als een inflammatoire versterker in de context van SARS-CoV-2-infectie, in plaats van simpelweg een bacteriële co-infectie te vertegenwoordigen. Vergeleken met inflammatoire modellen met enkel LPS, waar de achtergrond van een virale infectie ontbreekt, integreert het in deze studie tot stand gekomen gecombineerde model SARS-CoV-2-geïnduceerde immuunveranderingen met LPS-gemedieerde inflammatoire activatie, waardoor een completer platform wordt geboden voor het bestuderen van COVID-19-geassocieerde longschade.
IFN-I zijn cruciale effectormoleculen van de antivirale immuniteit van de gastheer en oefenen brede antivirale functen uit door een breed scala aan interferon-gestimuleerde genen (ISG's) te induceren33. Het is echter aangetoond dat SARS-CoV-2 IFN-I-signalering antagoniseert via meerdere mechanismen, waaronder interferentie met signaaltransductie via patroonherkenningsreceptoren (PRR), onderdrukking van de activering van interferon-regulerende factoren (IRF) en blokkade van de stroomafwaartse JAK-STAT-signalering, waardoor de antivirale verdediging van de gastheer wordt aangetast14,34. In deze studie werden significant verlaagde spiegels van IFN-α en IFN-β waargenomen in de longweefsels van de modelgroep, wat erop wijst dat de gastheer onder de synergetische effecten van virale infectie en LPS-stimulatie niet alleen een excessieve inflammatoire activatie vertoonde, maar ook een gelijktijdige onderdrukking van de antivirale immuniteit. Deze immuundysregulatie wordt beschouwd als een van de belangrijkste immunologische kenmerken in de ontwikkeling en progressie van COVID-198. Daarom recapituleert het huidige model gedeeltelijk dit complexe pathologische proces, wat een waardevol experimenteel instrument biedt voor verdere onderzoek naar COVID-19-geassocieerde immuundysregulatie en voor de ontwikkeling van gerelateerde therapeutische interventies.
Het COVID-19 muismodel dat in deze studie is ontwikkeld op basis van een gecombineerde toediening van SARS-CoV-2 en LPS, is in staat om belangrijke kenmerken van de ziektepathologie te reproduceren, waaronder verhoogde pro-inflammatoire cytokines en onderdrukking van IFN-I-signalering, waardoor de immuunonbalans die wordt waargenomen bij COVID-19-gerelateerde longschade gedeeltelijk wordt nagebootst. In vergelijking met modellen met enkelvoudige virale infectie incorporeert deze gecombineerde aanpak een exogeen aangeboren immuunstimulans om ziekterelevante inflammatoire responsen te versterken, waardoor de studie van pathologische processen geassocieerd met overmatige ontsteking en een aangetaste antivirale immuniteit mogelijk wordt. Bijgevolg kan dit model waardevol zijn voor het in vivo evalueren van kandidaat anti-inflammatoire, immunomodulerende en longherstelstrategieën, in het bijzonder die zich richten op immuundysregulatie in plaats van enkel op virale replicatie.
Er moeten echter enkele beperkingen van deze studie worden erkend. Ten eerste induceert LPS ontsteking primair via TLR4-activering, wat de complexe virus-gastheerinteracties bij klinische COVID-19 niet volledig weerspiegelt en de inflammatoire respons kan veranderen. Ten tweede zijn er weliswaar vergelijkende experimenten met groepen die uitsluitend SARS-CoV-2 of uitsluitend LPS kregen uitgevoerd tijdens de voorlopige optimalisatiefase, maar deze gegevens zijn niet in het manuscript opgenomen. Toekomstige studies zullen de individuele en gecombineerde effecten van SARS-CoV-2 en LPS verder evalueren om de bijdrage van elke component beter te definiëren. Ten derde is dit model ontworpen om belangrijke immunopathologische kenmerken van COVID-19-gerelateerde longschade te reproduceren, in het bijzonder immuun-inflammatoire dysregulatie, in plaats van het volledige natuurlijke verloop van een SARS-CoV-2-infectie. Ten slotte, hoewel de SARS-CoV-2-dosis en LPS-concentratie zijn bepaald op basis van voorlopige optimalisatie-experimenten, kunnen variaties in muizenstammen, virale varianten, testmethoden en experimentele condities de reproduceerbaarheid van het model beïnvloeden en verdere validatie in verschillende onderzoeksettings vereisen. Onder de in dit protocol beschreven geoptimaliseerde condities was het totale succespercentage voor de totstandebrenging van het model ongeveer 90%; dit percentage kan echter variëren tussen verschillende experimentele settings. Toekomstige studies zouden dit model verder kunnen optimaliseren door verschillende SARS-CoV-2-varianten, genetisch gemodificeerde muizenstammen of geavanceerde immuunprofileringsmethoden, zoals single-cell transcriptomische analyse, op te nemen om virus-gastheerinteracties beter te karakteriseren en therapeutische targets te identificeren. Deze inspanningen kunnen de translationele relevantie van dit model voor COVID-19-onderzoek verder verbeteren.
Openbaarmakingen
De auteurs hebben geen belangenconflicten om te openbaren.
Dankbetuigingen
Dit onderzoek werd ondersteund door The National Natural Science Foundation of China (82374291); Sichuan Science and Technology Program (2024NSFJQ0059); Special subject of scientific research of Sichuan Administration of Traditional Chinese Medicine (2024zd005); 2022 “Tianfu Qingcheng Plan” Tianfu Science and Technology Leading Talents Project (Chuan Qingcheng No. 1090); Joint Innovation Fund of Health Commission of Chengdu and Chengdu University of Traditional Chinese Medicine (WXLH202403091).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Automatische weefselprocessor | Dakewe Biotech Co., Ltd. | HP300 | Gebruikt voor weefseldehydratie. |
| Autostainer | Leica Biosystems | LEICA ST5010 | Gebruikt voor HE-kleuring. |
| Centrifuge | DLAB Scientific | D3024R | Gebruikt voor het centrifugeren van monsters of reagentia. |
| Constant-temperatuur waterbad | Shanghai LICHEN-BX Instrument Techonology Co., Ltd. | HH-6 | Gebruikt als constant-temperatuur waterbad. |
| Digitaal PCR-systeem | QIAGEN | QIAcuity One | Gebruikt voor RT-dPCR. |
| TransScript All-in-One First-Strand cDNA Synthesis SuperMix for qPCR (One-Step gDNA Removal) | TransGen Biotech Co.,Ltd. | AT341 | Gebruikt voor reverse transcriptie. |
| Eosine-oplossing | BASO | BA4024 | Gebruikt voor histologische kleuring. |
| Fluorescent kwantitatief PCR-systeem | Rocgene (Beijing) Technology Co., Ltd. | Archimed X6 | Gebruikt voor RT-qPCR. |
| Hematoxyline-oplossing | BASO | BA4041 | Gebruikt voor histologische kleuring. |
| IBM SPSS Statistics software | IBM Corp., Armonk, NY, USA | version 22.0 | Gebruikt voor statistische analyse. |
| Lipopolysachariden van Escherichia coli O55:B5 | Sigma-Aldrich (Shanghai) Trading Co., Ltd. | L2880 | Gebruikt voor muismodellering. |
| Microplate reader | Molecular Devices | SpectraMax Plus 384 | Gebruikt voor Elisa. |
| Mouse IFN-α ELISA KIT | ZCIBIO Technology Co., Ltd. | ZC-37863W | Gebruikt om IFN-α-niveaus in longweefsel van muizen te detecteren. |
| Mouse IFN-β ELISA KIT | ZCIBIO Technology Co., Ltd. | ZC-37887W | Gebruikt om IFN-β-niveaus in longweefsel van muizen te detecteren. |
| Mouse IL-1β ELISA KIT | ZCIBIO Technology Co., Ltd. | ZC-37974W | Gebruikt om IL-1β-niveaus in longweefsel van muizen te detecteren. |
| Mouse IL-6 ELISA KIT | ZCIBIO Technology Co., Ltd. | ZC-37988W | Gebruikt om IL-6-niveaus in longweefsel van muizen te detecteren. |
| Mouse TNF-α ELISA KIT | ZCIBIO Technology Co., Ltd. | ZC-39024W | Gebruikt om TNF-α-niveaus in longweefsel van muizen te detecteren. |
| One-Step RT-PCR Kit for Digital PCR | QIAGEN | 4829104 | Gebruikt voor digitale PCR. |
| Paraffine-insluitingsapparaat | Hubei Aristion Medical Industrial Co., Ltd. | ABM-7L | Gebruikt voor paraffine-insluiting van longweefsel van muizen. |
| QuantiNova SYBR PCR Mix Kit | QIAGEN | 1129280 | Gebruikt voor RT-qPCR. |
| RNeasy Plus Universal Mini Kit | QIAGEN | 1062832 | Gebruikt voor totale RNA-extractie. |
| Microtoom | Leica Biosystems | LEICA RM2235 | Gebruikt voor paraffinesneden. |
| Roestvrijstalen kraaltjes voor weefselhomogenisator | Beyotime Biotechnology | F6621 | Gebruikt voor het homogeniseren van longweefsel. |
| XG primer Pool 1.0 for Digital PCR | QIAGEN | 4828104 | Gebruikt voor digitale PCR. |
| Zoletil 50 | VIRBAC | BN9VS7A | Gebruikt voor het anesthetiseren van muizen. |
Referenties
- Zhang X, et al. SARS-CoV-2 Evolution: Immune Dynamics, Omicron Specificity, and Predictive Modeling in Vaccinated Populations. Adv Sci (Weinh). 2024;11(40):e2402639.
- Yu Y, et al. COVID-19 Serum Drives Spike-Mediated SARS-CoV-2 Variation. Viruses. 2024;16(5):763.
- Alhamlan FS, Al-Qahtani AA. SARS-CoV-2 Variants: Genetic Insights, Epidemiological Tracking, and Implications for Vaccine Strategies. Int J Mol Sci. 2025;26(3):1263.
- Habashi NM, Camporota L, Gatto LA, Nieman G. Functional pathophysiology of SARS-CoV-2-induced acute lung injury and clinical implications. J Appl Physiol (1985). 2021;130(3):877-891.
- Nie X, et al. Multi-organ proteomic landscape of COVID-19 autopsies. Cell. 2021;184(3):775-791.e14.
- Blanco-Melo D, et al. Imbalanced Host Response to SARS-CoV-2 Drives Development of COVID-19. Cell. 2020;181(5):1036-1045.e9.
- Wang J, Li Q, Qiu Y, Lu H. COVID-19: imbalanced cell-mediated immune response drives to immunopathology. Emerg Microbes Infect. 2022;11(1):2393-2404.
- Sa Ribero M, Jouvenet N, Dreux M, Nisole S. Interplay between SARS-CoV-2 and the type I interferon response. PLoS Pathog. 2020;16(7):e1008737.
- El-Saber Batiha G, Al-Gareeb AI, Saad HM, Al-Kuraishy HM. COVID-19 and corticosteroids: a narrative review. Inflammopharmacology. 2022;30(4):1189-1205.
- Ye Q, Wang B, Mao J. The pathogenesis and treatment of the 'Cytokine Storm' in COVID-19. J Infect. 2020;80(6):607-613.
- Jiang Y, et al. Cytokine storm in COVID-19: from viral infection to immune responses, diagnosis and therapy. Int J Biol Sci. 2022;18(2):459-472.
- Zhang S, Wang L, Cheng G. The battle between host and SARS-CoV-2: Innate immunity and viral evasion strategies. Mol Ther. 2022;30(5):1869-1884.
- Beyer DK, Forero A. Mechanisms of Antiviral Immune Evasion of SARS-CoV-2. J Mol Biol. 2022;434(6):167265.
- Lei X, et al. Activation and evasion of type I interferon responses by SARS-CoV-2. Nat Commun. 2020;11(1):3810.
- Mostafa-Hedeab G, et al. A raising dawn of pentoxifylline in management of inflammatory disorders in Covid-19. Inflammopharmacology. 2022;30(3):799-809.
- Chen Z, et al. SARS-CoV-2 immunity in animal models. Cell Mol Immunol. 2024;21(2):119-133.
- Johansen MD, et al. Animal and translational models of SARS-CoV-2 infection and COVID-19. Mucosal Immunol. 2020;13(6):877-891.
- Zhang Y, et al. SARS-CoV-2 rapidly adapts in aged BALB/c mice and induces typical pneumonia. J Virol. 2021;95(11):e02477-20.
- Sun SH, et al. A Mouse Model of SARS-CoV-2 Infection and Pathogenesis. Cell Host Microbe. 2020;28(1):124-133.e4.
- Muñoz-Fontela C, et al. Animal models for COVID-19. Nature. 2020;586(7830):509-515.
- Liu T, et al. Therapeutic potential of inosine in acute lung injury: mechanistic insights into TLR4 suppression and macrophage polarization. Phytomedicine. 2025;143:156854.
- Powers JM, et al. Divergent pathogenetic outcomes in BALB/c mice following Omicron subvariant infection. Virus Res. 2024;341:199319.
- Fan F, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule's protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Xie N, et al. Rhodiola crenulate alleviates hypobaric hypoxia-induced brain injury via adjusting NF-κB/NLRP3-mediated inflammation. Phytomedicine. 2022;103:154240.
- Jiang S, et al. Generic Diagramming Platform (GDP): a comprehensive database of high-quality biomedical graphics. Nucleic Acids Res. 2025;53(D1):D1670-D1676.
- Onohuean H, et al. Covid-19 and development of heart failure: mystery and truth. Naunyn Schmiedebergs Arch Pharmacol. 2021;394(10):2013-2021.
- Zarrilli G, et al. The Immunopathological and Histological Landscape of COVID-19-Mediated Lung Injury. Int J Mol Sci. 2021;22(2):974.
- Fernandes de Souza WD, et al. Lung Inflammation Induced by Inactivated SARS-CoV-2 in C57BL/6 Female Mice Is Controlled by Intranasal Instillation of Vitamin D. Cells. 2023;12(7):1092.
- Ciesielska A, Matyjek M, Kwiatkowska K. TLR4 and CD14 trafficking and its influence on LPS-induced pro-inflammatory signaling. Cell Mol Life Sci. 2021;78(4):1233-1261.
- Brandenburg K, et al. A Comparison between SARS-CoV-2 and Gram-Negative Bacteria-Induced Hyperinflammation and Sepsis. Int J Mol Sci. 2023;24(20):15169.
- Samsudin F, et al. SARS-CoV-2 spike protein as a bacterial lipopolysaccharide delivery system in an overzealous inflammatory cascade. J Mol Cell Biol. 2023;14(9):mjac058.
- Petruk G, et al. SARS-CoV-2 spike protein binds to bacterial lipopolysaccharide and boosts proinflammatory activity. J Mol Cell Biol. 2020;12(12):916-932.
- Martin-Sancho L, et al. Functional landscape of SARS-CoV-2 cellular restriction. Mol Cell. 2021;81(12):2656-2668.e8.
- Minkoff JM, tenOever B. Innate immune evasion strategies of SARS-CoV-2. Nat Rev Microbiol. 2023;21(3):178-194.