Deze studie evalueert de expressie van ARHGAP22 in heldercellig niercelcarcinoom en de associaties hiervan met de prognose, clinicopathologische kenmerken, de immuunmicro-omgeving van de tumor en computationeel voorspelde druggevoeligheid.
Onderzoeksartikel
ARHGAP22 als potentiële prognostische biomarker bij heldercellig niercelcarcinoom: inzichten in tumorimmuniteit en co-expressienetwerken
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Heldercelnig niercelcarcinoom (ccRCC) is het meest voorkomende subtype van nierkanker en wordt gekenmerkt door aanzienlijke klinische heterogeniteit, wat de behoefte aan betrouwbare prognostische biomarkers benadrukt. Deze studie evalueerde het expressiepatroon, de prognostische relevantie en de immuungerelateerde associaties van ARHGAP22 in ccRCC met behulp van transcriptomische en klinische gegevens van de cohort The Cancer Genome Atlas Kidney Renal Clear Cell Carcinoma (TCGA-KIRC), samen met externe validatiegegevens en eiwitexpressie-informatie van de Human Protein Atlas (HPA). De expressie van ARHGAP22 werd vergeleken tussen tumorweefsel en aangrenzend normaal weefsel, en de associaties met de algehele overleving, clinicopathologische kenmerken, scores van de tumormicro-omgeving en geschatte fracties van immuuncellen werden beoordeeld. Co-expressie- en functionele verrijkingsanalyses werden even tevoren uitgevoerd om potentiële biologische associaties te karakteriseren. ARHGAP22 was significant upgereguleerd in ccRCC-weefsels op transcriptomisch niveau, waarbij overeenkomstige verschillen werden waargenomen in immunohistochemische beelden. Een hoge expressie van ARHGAP22 was geassocieerd met een kortere algehele overleving, gevorderde clinicopathologische kenmerken en hogere waarden voor de ImmuneScore, StromalScore en ESTIMATEScore. Analyse op basis van CIBERSORT toonde aan dat de groep met een hoge expressie, na correctie voor de false discovery rate, hogere geschatte fracties van M2-macrofagen en regulatoire T-cellen had en lagere geschatte fracties van naïeve B-cellen, rustende mestcellen en geactiveerde dendritische cellen. Functionele verrijkingsanalyses koppelden ARHGAP22-geassocieerde genen aan immuungerelateerde processen, celmigratie en chemokine- en cytokine-gemedieerde signaleringspaden. Deze bevindingen suggereren dat ARHGAP22 een potentiële prognostische en immuungerelateerde biomarker in ccRCC kan zijn, hoewel verdere onafhankelijke klinische en experimentele validatie vereist is.
Inleiding
Heldercelig niercelcarcinoom (ccRCC) is het meest voorkomende histologische subtype van niercelcarcinoom, goed voor ongeveer 70%–80% van de gevallen en een substantiële bijdrage leverend aan de sterfte gerelateerd aan nierkanker1˒2. De incidentie van niercelcarcinoom is de afgelopen jaren algemeen toegenomen, met duidelijke epidemiologische variatie tussen regio's. Gevestigde risicofactoren zijn onder meer roken, obesitas, hypertensie en chronische nierziekte3˒4. Heldercelig niercelcarcinoom wordt gekenmerkt door een uitgesproken agressiviteit en moleculaire heterogeniteit. Een deel van de patiënten presenteert zich bij diagnose met metastatische ziekte, en postoperatieve recidieven en progressie komen veelvuldig voor2˒5. Op moleculair niveau worden de inactivatie van von Hippel–Lindau (VHL) en de aanhoudende activering van hypoxia-inducible factor (HIF)-signalering erkend als sleutelgebeurtenissen in de pathogenese van ccRCC, welke gepaard gaan met uitgebreide genomische en epigenetische veranderingen6˒7. Hoewel doelgerichte therapieën en immunotherapieën de uitkomsten bij gevorderde ziekte hebben verbeterd, blijven behandelingsresponsen zeer heterogeen, wat de noodzaak voor betrouwbare prognostische en immuungerelateerde biomarkers onderstreept8,9,10.
Rho-guanosinetrifosfatases (Rho-GTPases) zijn moleculaire schakelaars die de remodellering van het cytoskelet, celpolariteit, adhesie, migratie en invasie reguleren en hebben veelzijdige rollen bij tumorigenese en kankerprogressie11˒12. Naast het reguleren van de proliferatie, apoptose en mobiliteit van tumorcellen, draagt Rho-GTPase-signalering bij aan angiogenese, ontstekingsreacties en de remodellering van de immuunmicro-omgeving van de tumor13,14,15. Het biologische belang van Rho-GTPase-signalering bij ccRCC heeft toenemende aandacht gekregen. Er is gerapporteerd dat Rac-signalering de groei en angiogene switch bij ccRCC bevordert, terwijl VHL/HIF-gedreven ccRCC mogelijk afhankelijk is van de Rho-GTPase/Rho-geassocieerde coiled-coil-bevattende proteïnekinase (ROCK)-route16˒17. Rho-GTPase-gerelateerde gensignaturen zijn ook geassocieerd met een slechte prognose, een immunosuppressieve status en differentiële reacties op immunotherapie bij ccRCC, wat suggereert dat deze route een belangrijke moleculaire schakel kan vormen tussen tumorprogressie en tumorimmuniteit18˒19.
ARHGAP22 behoort tot de Rho GTPase-activerend eiwitfamilie (RhoGAP) en de FilGAP-gerelateerde subfamilie en fungeert primair als een Rac-specifieke RhoGAP die betrokken is bij de antagonistische regulatie van de RhoA–Rac1-as20˒21. Het eiwit bevat een pleckstrinhomologiedomein (PH-domein) en een RhoGAP-domein en kan de Rac-activiteit reguleren via endosomale lokalisatie en transport naar het plasmamembraan, waardoor de vorming van lamellipodia, celspreiding en migratie worden beïnvloed20˒22˒23. Eerdere studies hebben ARHGAP22 geassocieerd met cytoskeletdynamiek, motiliteit van tumorcellen, de immuunmicro-omgeving van tumoren en potentiële rollen als biomarker bij verschillende maligniteiten20,23,24,25. Echter, het expressiepatroon, de prognostische significantie, immuunassociaties en potentiële therapeutische relevantie van ARHGAP22 bij ccRCC zijn nog onvoldoende gekarakteriseerd. De huidige studie evalueerde daarom of ARHGAP22-expressie geassocieerd is met clinicopathologische progressie, patiëntprognose, immuuninfiltratie, computationeel voorspelde druggevoeligheid en co-expressienetwerken bij ccRCC, met als doel de potentiële waarde ervan als prognostische en immuungerelateerde biomarker te beoordelen.
Protocol
Deze studie maakte gebruik van openbaar beschikbare, gede-identificeerde gegevens van TCGA, HPA en andere databases met open toegang en hield geen werving van nieuwe menselijke proefpersonen, dierproeven of identificeerbare privégegevens in. Daarom waren aanvullende institutionele ethische goedkeuring en geïnformeerde toestemming niet vereist. Gedetailleerde informatie over de in het protocol gebruikte hulpmiddelen wordt gegeven in de Tabel met materialen.
1. Publieke datasets en bio-informatica-analyse
Er is gebruikgemaakt van publiek beschikbare datasets en er is geen direct onderzoek uitgevoerd met menselijke deelnemers of dieren. Transcriptomische en klinische gegevens zijn verkregen uit het The Cancer Genome Atlas Kidney Renal Clear Cell Carcinoma (TCGA-KIRC) project, en proteïne-expressiegegevens zijn opgehaald uit de Human Protein Atlas. Deze computationele benadering maakte efficiënte screening van grootschalige transcriptomische en klinische datasets mogelijk, ondersteunde de preliminaire identificatie van kandidaat-biomarkers en vormde de basis voor daaropvolgende experimentele validatie. Alle computationele analyses zijn uitgevoerd met statistische software.
2. Dataverzameling en steekproefselectie
Het Genomic Data Commons Data Portal werd geraadpleegd en het TCGA-KIRC-project werd geselecteerd. Transcriptoomprofielgegevens en de bijbehorende klinische informatie voor heldercellig niercelcarcinoom (ccRCC) werden gedownload. Voor de daaropvolgende transcriptoomanalyses werden messenger RNA-expressiegegevens gebruikt die waren genormaliseerd naar transcripts per miljoen (TPM). De expressiewaarden van ARHGAP22 werden geëxtraheerd uit de TCGA-KIRC transcriptoommatrix en gekoppeld aan de overeenkomstige klinische dossiers met behulp van de TCGA-monsterbarcodes. Primaire tumorweefsels en aangrenzende normale nierweefsels met beschikbare ARHGAP22-expressiegegevens en klinische annotaties werden geïncludeerd. Monsters met ontbrekende ARHGAP22-expressiewaarden, onvolledige cruciale klinische- of overlevingsinformatie, dubbele records of overlevingstijden van minder dan 30 dagen werden uitgesloten. Na filtering bleven 533 tumorstalen en 72 aangrenzende normale weefselstalen over voor verdere analyses.
3. Pan-cancer expressieanalyse
De pan-cancer expressieanalyse van ARHGAP22 werd uitgevoerd met de Gene_DE-module van TIMER2.0 (http://timer.cistrome.org/; geraadpleegd op 12 april 2026). TCGA RNA-sequencingdata werden gebruikt om de expressie van ARHGAP22 tussen tumorweefsels en overeenkomstige normale weefsels over meerdere kankertypes heen te vergelijken. Expressiewaarden werden weergegeven als log2(TPM), en differentiële expressie werd geëvalueerd met de Wilcoxon rank-sum test die is geïmplementeerd in TIMER2.0. Een tweezijdige P-waarde van minder dan 0,05 werd beschouwd als statistisch significant.
4. Externe GEO-validatie
Externe validatie werd uitgevoerd met de Gene Expression Omnibus-dataset GSE167573 via het online platform BEST (https://rookieutopia.hiplot.com.cn/app_direct/BEST/; geraadpleegd op 9 juli 2026). De expressie van ARHGAP22 in ccRCC en normaal nierweefsel werd vergeleken met behulp van de genormaliseerde expressiegegevens van het platform en beoordeeld via een ongepaarde Student's t-toets. Voor de overlevingsanalyse werden patiënten verdeeld in groepen met een hoge en lage expressie met behulp van de optimale cutoff-methode van het platform, en werd de algehele overleving geëvalueerd middels een Kaplan-Meier-analyse met de log-rank toets. Een tweezijdige P-waarde van minder dan 0,05 werd als statistisch significant beschouwd.
5. ARHGAP22 expressieanalyse
TPM-genormaliseerde ARHGAP22 messenger RNA-expressiegegevens werden geëxtraheerd uit de TCGA-KIRC cohort en getransformeerd als log2(TPM + 1) voorafgaand aan de statistische analyse. De differentiële ARHGAP22-expressie tussen primaire tumorweefsels en aangrenzende normale nierweefsels werd geëvalueerd. De Wilcoxon rank-sum test werd gebruikt voor ongepaarde vergelijkingen tussen tumor- en normaal weefsel. Voor de gepaarde analyse werden gematchte tumor-normaal paren geïdentificeerd met behulp van TCGA patiënt-barcodes, en de Wilcoxon signed-rank test werd toegepast om de ARHGAP22-expressie tussen aangrenzende normale weefsels en de overeenkomstige tumorweefsels te vergelijken. Een tweezijdige P-waarde van minder dan 0,05 werd als statistisch significant beschouwd.
6. Overleving en receiver operating characteristic-analyse
Analyses van de overleving en tijdsonafhankelijke receiver operating characteristic (ROC) werden uitgevoerd met TCGA-KIRC tumorstalen met beschikbare klinische follow-upgegevens. De totale overlevingstijd werd omgerekend van dagen naar jaren. Patiënten werden ingedeeld in groepen met een hoge en lage ARHGAP22-expressie op basis van de mediane ARHGAP22-expressiewaarde, en dezelfde afkapwaarde werd consistent toegepast in alle analyses waarbij groepering op basis van expressie plaatsvond. Kaplan-Meier-curves werden gegenereerd met het survival-pakket en het survminer-pakket. Verschillen tussen groepen werden beoordeeld met de log-rank toets. Cox proportional hazards regressie werd gebruikt om hazard ratio's en 95% betrouwbaarheidsintervallen te schatten. Tijdsonafhankelijke ROC-curves werden gegenereerd met het timeROC-pakket. De oppervlakten onder de curve (AUC) na 1, 3 en 5 jaar werden berekend met de Aalen-wegingsmethode. Een tweezijdige P-waarde van minder dan 0,05 werd als statistisch significant beschouwd.
7. Clinicopathologische associatieanalyse
De associatie tussen de expressie van ARHGAP22 en clinicopathologische kenmerken werd geanalyseerd met behulp van TCGA-KIRC tumorstalen. Normale stalen werden uitgesloten. De leeftijd werd gecategoriseerd als 65 jaar of jonger en ouder dan 65 jaar. Stalen met onbekende of ontbrekende annotaties werden uitgesloten van de betreffende analyse. De Wilcoxon rank-sum test werd gebruikt voor vergelijkingen tussen twee groepen, en de Kruskal–Wallis test werd gebruikt voor vergelijkingen met drie of meer groepen. Violin plots werden gegenereerd met behulp van het ggpubr pakket; ggplot2 en scales. Voor heatmap-visualisatie werden patiënten ingedeeld in groepen met een hoge en lage ARHGAP22-expressie op basis van de mediaan. Associaties tussen expressiegroepen en clinicopathologische variabelen werden beoordeeld met chi-kwadraattoetsen. Heatmaps werden gegenereerd met ComplexHeatmap, na voorverwerking met limma. Een tweezijdige P-waarde van minder dan 0,05 werd beschouwd als statistisch significant.
8. Constructie van het nomogram
Een prognostisch nomogram werd geconstrueerd door de expressie van ARHGAP22 te integreren met beschikbare clinicopathologische kenmerken in een Cox proportional hazards regressiemodel. Het model werd gebruikt om de 1-, 3- en 5-jarige algehele overleving in de TCGA-KIRC cohort te schatten. Individuele risicoscores voor patiënten werden berekend met behulp van het gefitte Cox-model. Kalibratiecurves voor de 1-, 3- en 5-jarige algehele overleving werden gegenereerd met de Kaplan-Meier-methode met 1.000 bootstrap-resampling iteraties. De overeenstemming tussen de door het nomogram voorspelde overlevingskansen en de waargenomen overlevingsuitkomsten werd geëvalueerd. De Cox-regressie werd uitgevoerd met het survival-pakket. De visualisatie van het nomogram en de kalibratieanalyses werden uitgevoerd met regplot en rms. Een tweezijdige P-waarde van minder dan 0,05 werd als statistisch significant beschouwd.
9. Co-expressieanalyse
Transcriptomische gegevens van TCGA-KIRC tumorstalen werden gebruikt om co-expressierelaties tussen ARHGAP22 en alle andere genen te evalueren middels Pearson-correlatieanalyse. Genen met een absolute Pearson-correlatiecoëfficiënt groter dan 0,6 en een P-waarde van minder dan 0,001 werden gedefinieerd als significant co-expressieve genen. De significant co-expressieve genen werden gerangschikt op basis van de absolute waarde van de correlatiecoëfficiënt. De hoogst gerangschikte genen werden geselecteerd voor de constructie van een correlatiematrix, en er werd een chord-diagram gegenereerd om het ARHGAP22-geassocieerde co-expressienetwerk te visualiseren.
10. Analyses van differentieel tot expressie gekomen genen en functionele verrijking
De analyse van differentiële expressie tussen de groepen met een hoge en lage ARHGAP22-expressie werd uitgevoerd met de Wilcoxon rank-sum test met correctie voor de false discovery rate (FDR). Genen met een absolute log2-vouwverandering groter dan 1 en een FDR van minder dan 0,05 werden gedefinieerd als significant differentieel tot expressie gekomen genen. De resultaten werden gevisualiseerd met een volcano plot en een heatmap. Verrijkingsanalyses voor Gene Ontology en de Kyoto Encyclopedia of Genes and Genomes werden uitgevoerd met clusterProfiler. Gensymbolen werden omgezet naar Entrez-identificatoren met behulp van org.Hs.eg.db. Gene Ontology-termen en Kyoto Encyclopedia of Genes and Genomes-paden met zowel een nominale P-waarde van minder dan 0,05 als een FDR-gecorrigeerde P-waarde van minder dan 0,05 werden als significant verrijkt beschouwd. Gene Set Enrichment Analysis werd uitgevoerd met Kyoto Encyclopedia of Genes and Genomes-gensets uit het bestand c2.cp.kegg.v7.4.symbols.gmt van de Molecular Signatures Database. Genen werden gerangschikt op log2-vouwverandering, en gensets met een nominale P-waarde < 0,05 werden als significant verrijkt beschouwd.
11. Analyse van immuuninfiltratie en immuun-checkpoint
Analyses van immuuninfiltratie en immuun-checkpoint werden uitgevoerd met TCGA-KIRC tumorale monsters. StromalScore, ImmuneScore en ESTIMATEScore waarden werden berekend met het estimate pakket. Immuuncelfracties werden geschat met het CIBERSORT R-script, met 1.000 permutaties en kwantielnormalisatie. Monsters met een CIBERSORT deconvolution P-waarde van minder dan 0,05 werden behouden. Patiënten werden verdeeld in ARHGAP22-hoge en ARHGAP22-lage groepen op basis van het mediane ARHGAP22-expressieniveau. Verschillen in ESTIMATE-scores en immuuncelfracties tussen de twee groepen werden beoordeeld met de Wilcoxon rank-sum test. Correlaties tussen ARHGAP22-expressie en immuun-checkpoint-genen werden geëvalueerd met Pearson-correlatieanalyse. P-waarden van meerdere immuuncelvergelijkingen en immuun-checkpoint-correlatietests werden aangepast met de Benjamini–Hochberg FDR-methode, waarbij een FDR van minder dan 0,05 als statistisch significant werd beschouwd. FDR-significante immuun-checkpoint-genen werden gevisualiseerd met correlatie-heatmaps gegenereerd met corrplot. Datapreprocessing en visualisatie werden primair uitgevoerd met limma, ggpubr en corrplot.
12. Voorspelling van druggevoeligheid
TCGA-KIRC tumor-transcriptoomdata werden gebruikt nadat normale weefselmonsters waren uitgesloten. Computationeel voorspelde waarden voor de half-maximale inhiberende concentratie werden berekend met het oncoPredict-pakket en de referentiedataset gebaseerd op Genomics of Drug Sensitivity in Cancer 2. Patiënten werden verdeeld in ARHGAP22-hoge en ARHGAP22-lage groepen op basis van de mediaanwaarde van de ARHGAP22-expressie. De voorspelde waarden voor de half-maximale inhiberende concentratie werden tussen de groepen vergeleken met de Wilcoxon rank-sum test. P-waarden van meerdere drugvergelijkingen werden gecorrigeerd met de Benjamini–Hochberg-methode, en een FDR van minder dan 0,05 werd als statistisch significant beschouwd. De resultaten werden geïnterpreteerd als computationeel voorspelde schattingen van de druggevoeligheid in plaats van experimenteel gevalideerde of klinisch waargenomen drugresponsen.
13. Validatie via de Human Protein Atlas
De database van de Human Protein Atlas werd geraadpleegd en er werd gezocht naar ARHGAP22. De sectie Tissue werd beoordeeld om de expressie van het ARHGAP22-eiwit in normaal nierweefsel vast te stellen. Vervolgens werd de sectie Pathology geopend, waarbij heldercellig niercelcarcinoom werd geselecteerd en de expressie van het ARHGAP22-eiwit in tumorweefsel werd beoordeeld. Representatieve immunohistochemische beelden van normaal nierweefsel en ccRCC-weefsel werden opgehaald en geselecteerd voor opname in het manuscript om de expressie van het ARHGAP22-eiwit tussen normaal weefsel en tumorweefsel te vergelijken.
Resultaten
Pan-cancer expressieprofilering van ARHGAP22
Pan-cancer transcriptionele profilering toonde een uitgesproken heterogeniteit in de expressie van ARHGAP22 over verschillende tumortypen en overeenkomstige normale weefsels (Figuur 1). In verschillende solide tumoren werd een algemene trend waargenomen naar een verhoogde expressie van ARHGAP22. De expressie van ARHGAP22 was significant hoger in tumorweefsels dan in overeenkomstige normale weefsels bij invasief borstcarcinoom, cholangiocarcinoom, plaveiselcelcarcinoom van de hoofd- en halsregio, chromofoob niercelcarcinoom, heldercellig niercelcarcinoom, papillair niercelcarcinoom en hepatocellulair carcinoom van de lever. Deze bevindingen gaven aan dat ARHGAP22 differentieel tot expressie komt in meerdere kankertypen en mogelijk relevant is als tumor-geassocieerde biomarker.
Expressiepatroon en prognostische waarde van ARHGAP22 bij heldercellig niercelcarcinoom
Het expressiepatroon en de klinische relevantie van ARHGAP22 bij heldercellig niercelcarcinoom (ccRCC) werden geëvalueerd aan de hand van transcriptomische gegevens, overlevingsanalyses, een onafhankelijke validatiedataset en immunohistochemische beelden. De expressie van ARHGAP22 was significant hoger in ccRCC-weefsels dan in normaal nierweefsel in zowel niet-gepaarde als gepaarde The Cancer Genome Atlas Kidney Renal Clear Cell Carcinoma (TCGA-KIRC) monsters (Figuur 1B, C). Kaplan-Meier-analyse toonde aan dat patiënten met een hoge ARHGAP22-expressie een significant kortere algehele overleving (OS) hadden dan patiënten met een lage expressie (P = 0,013; Figuur 1D). Tijdsafhankelijke receiver operating characteristic-analyse leverde areas under the curve op van 0,641, 0,637 en 0,641 voor respectievelijk 1-, 3- en 5-jarige OS, wat duidt op een bescheiden prognostische prestatie (Figuur 1E). De bevindingen werden verder geëvalueerd met behulp van de onafhankelijke GSE167573-dataset. De expressie van ARHGAP22 was significant hoger in ccRCC-weefsels dan in normaal nierweefsel (Figuur 1F), en een hoge ARHGAP22-expressie was geassocieerd met een kortere OS (Figuur 1G). Immunohistochemische beelden afkomstig van de Human Protein Atlas toonden sterkere ARHGAP22-proteinkleuring in ccRCC-weefsel dan in normaal nierweefsel, wat aanvullende ondersteuning op proteïneniveau bood voor de transcriptomische bevindingen (Figuur 1H, I).
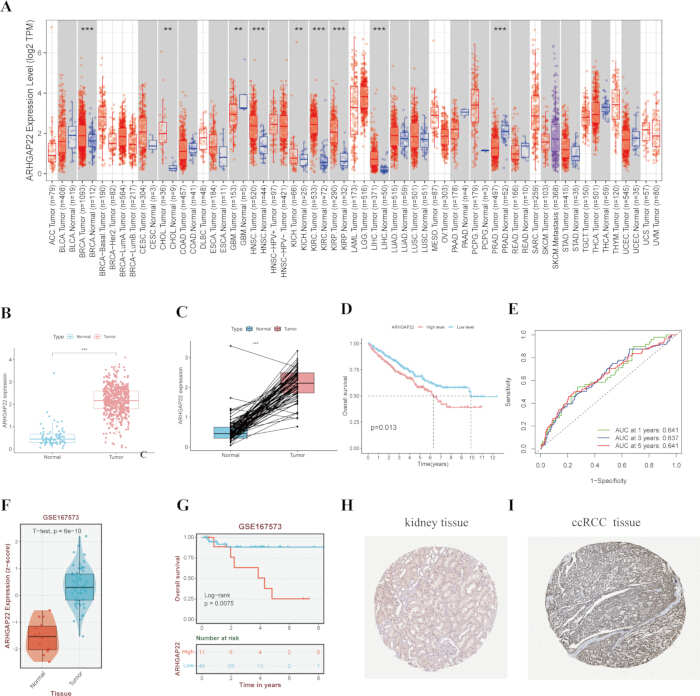
Figuur 1: Pan-cancer expressie, expressiepatroon en prognostische waarde van ARHGAP22 bij heldercellig niercelcarcinoom. (A) Pan-cancer expressieprofiel van ARHGAP22 in meerdere tumortypen en overeenkomstige normale weefsels. (B) ARHGAP22 expressie in niet-gepaarde heldercellig niercelcarcinoom (ccRCC) en normale nierweefsels. (C) ARHGAP22 expressie in gematchte ccRCC en aangrenzende normale nierweefsels. (D) Kaplan–Meier overall survival curves waarin patiënten met een hoge en lage ARHGAP22 expressie worden vergeleken. (E) Tijdafhankelijke receiver operating characteristic curves die de prognostische prestaties van ARHGAP22 evalueren voor de overall survival na 1, 3 en 5 jaar. (F) Validatie van ARHGAP22 expressie in de GSE167573 dataset. (G) Kaplan–Meier overall survival analyse in de GSE167573 dataset. (H, I) Immunohistochemische afbeeldingen van de Human Protein Atlas die ARHGAP22 eiwitexpressie tonen in normaal nierweefsel (H) en ccRCC weefsel (I). *P < 0.05; **P < 0.01; ***P < 0.001. Afkortingen: ccRCC, heldercellig niercelcarcinoom; OS, overall survival; ROC, receiver operating characteristic; DEG, differentieel tot expressie gebracht gen; GO, Gene Ontology; KEGG, Kyoto Encyclopedia of Genes and Genomes; GSEA, Gene Set Enrichment Analysis; FDR, false discovery rate; IC50, half-maximale inhiberende concentratie. Klik hier om een grotere versie van deze figuur te bekijken.
Associatie van ARHGAP22 met clinicopathologische kenmerken
De associatie tussen ARHGAP22-expressie en clinicopathologische kenmerken werd geëvalueerd om te bepalen of de expressie varieerde met de ernst van de ziekte. De ARHGAP22-expressie was significant hoger bij patiënten met gevorderde T-, M- en N-classificaties, inclusief patiënten met metastatische ziekte (Figuur 2A–C). De expressie nam ook toe bij een stijgende histologische graad en klinisch stadium (Figuur 2D, E). Heatmap-analyse toonde verder significante associaties aan tussen een hoge ARHGAP22-expressie en een hogere histologische graad, een gevorderd klinisch stadium en een ongunstige tumor-node-metastasis-classificatie (Figuur 2F). Deze resultaten gaven aan dat een verhoogde ARHGAP22-expressie geassocieerd was met agressievere clinicopathologische kenmerken bij ccRCC.
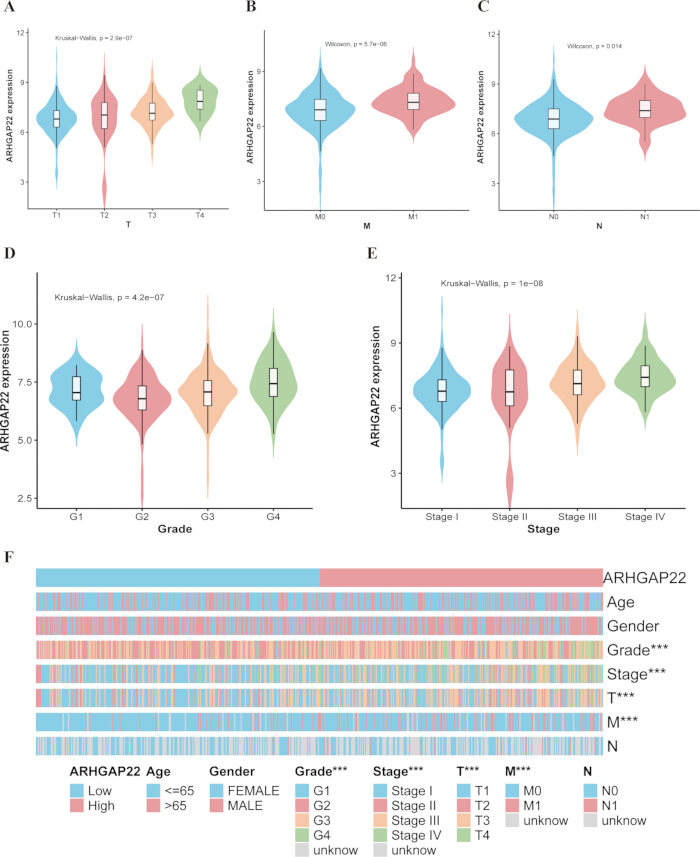
Figuur 2: Associatie tussen ARHGAP22-expressie en clinicopathologische kenmerken bij heldercellig niercelcarcinoom. (A–C) ARHGAP22-expressie volgens respectievelijk T-, M- en N-classificatie. (D) ARHGAP22-expressie volgens histologische graad. (E) ARHGAP22-expressie volgens klinisch stadium. (F) Heatmap die de associaties tussen ARHGAP22-expressie en clinicopathologische kenmerken laat zien. *P < 0.05; **P < 0.01; ***P < 0.001. Klik hier om een grotere versie van deze figuur te bekijken.
Klinicopathologische kenmerken en algehele overleving
Kaplan-Meier-analyse toonde significante verschillen in OS aan tussen clinicopathologische subgroepen (Figuur 3). Patiënten met hogere histologische gradaties, G3–G4, hadden een significant kortere OS dan patiënten met lagere gradaties, G1–G2 (P < 0,0001; Figuur 3A). Patiënten met ziekte in stadium III–IV hadden eveneens een significant kortere OS dan patiënten met ziekte in stadium I–II (P < 0,0001; Figuur 3B). De algehele overleving verschilde significant tussen subgroepen van de T-classificatie, waarbij gevorderde T-classificaties geassocieerd waren met minder gunstige uitkomsten (P < 0,0001; Figuur 3C). Patiënten met lymfekliermetastasen (N1) of distante metastasen (M1) hadden ook een significant kortere OS dan patiënten zonder lymfekliermetastasen of distante metastasen (beide P < 0,0001; Figuur 3D, E). Deze bevindingen bevestigden dat histologische gradatie, klinisch stadium en de tumor-node-metastasis classificatie geassocieerd waren met de overleving bij ccRCC.
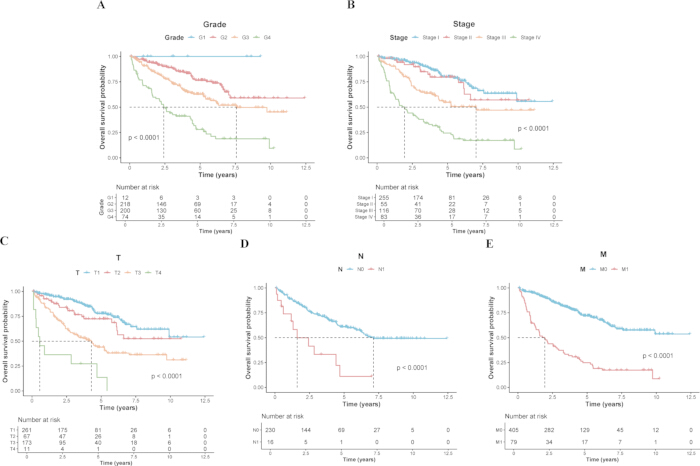
Figuur 3: Algehele overleving op basis van clinicopathologische kenmerken bij heldercellig niercelcarcinoom. (A–E) Kaplan–Meier-curves voor de algehele overleving op basis van respectievelijk histologische graad, klinisch stadium, T-classificatie, N-classificatie en M-classificatie. Klik hier om een grotere versie van deze figuur te bekijken.
Prognostisch nomogram voor heldercellig niercelcarcinoom
Er werd een prognostisch nomogram geconstrueerd waarin de expressie van ARHGAP22 werd geïntegreerd met beschikbare clinicopathologische kenmerken om de 1-, 3- en 5-jaars OS bij patiënten met ccRCC te schatten (Figuur 4A). Kalibratieanalyse toonde overeenstemming aan tussen de door het nomogram voorspelde en de waargenomen overlevingskansen op alle drie de tijdstippen. De kalibratiecurves lagen dicht bij de ideale referentielijn, wat duidt op een bevredigende kalibratieprestatie (Figuur 4B). Het klinische model had een concordantie-index van 0,779 (95% betrouwbaarheidsinterval, 0,729–0,828), terwijl de toevoeging van ARHGAP22 leidde tot een concordantie-index van 0,781 (95% betrouwbaarheidsinterval, 0,735–0,827), wat wijst op een minimale incrementele prognostische verbetering.
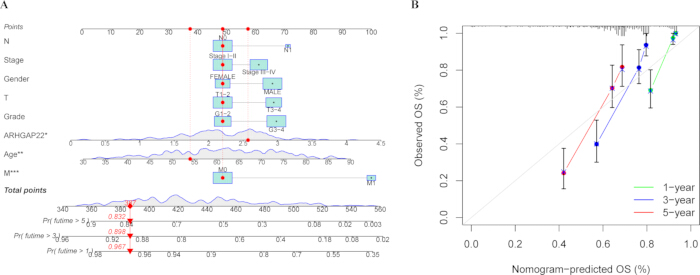
Figuur 4: Op ARHGAP22 gebaseerd prognostisch nomogram en kalibratieanalyse bij heldercellig niercelcarcinoom. (A) Nomogram voor het schatten van de algehele overleving na 1, 3 en 5 jaar. (B) Kalibratiecurves waarin de door het nomogram voorspelde en de waargenomen algehele overleving na 1, 3 en 5 jaar worden vergeleken. Klik hier om een grotere versie van deze figuur te bekijken.
Moleculaire netwerkanalyse van ARHGAP22
Er werd een correlatieanalyse uitgevoerd om het moleculaire netwerk geassocieerd met de expressie van ARHGAP22 te karakteriseren. Het correlatienetwerk toonde associaties aan tussen ARHGAP22 en meerdere genen in ccRCC (Figuur 5A). De expressie van ARHGAP22 was significant positief gecorreleerd met GMIP, TRPM2, CARD9, FMNL1, STAC3 en MYO9B. Significante negatieve correlaties werden waargenomen met BSND, HEPACAM2, ATP6V1G3, TMEM38A en FOXI1 (Figuur 5B–L). Deze bevindingen gaven aan dat de expressie van ARHGAP22 geassocieerd was met een complex co-expressienetwerk in ccRCC.
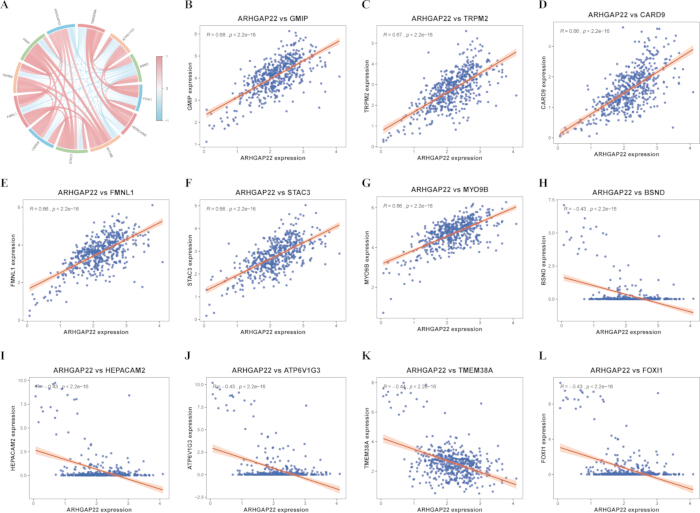
Figuur 5: ARHGAP22-geassocieerde moleculaire kenmerken bij heldercellig niercelcarcinoom. (A) Correlatienetwerk dat de associaties tussen ARHGAP22 en gerelateerde genen weergeeft. (B–G) Positieve correlaties tussen ARHGAP22 en respectievelijk GMIP, TRPM2, CARD9, FMNL1, STAC3 en MYO9B. (H–L) Negatieve correlaties tussen ARHGAP22 en respectievelijk BSND, HEPACAM2, ATP6V1G3, TMEM38A en FOXI1. Klik hier om een grotere versie van deze figuur te bekijken.
Differentieel tot expressie gebrachte genen geassocieerd met ARHGAP22
Monsters van heldercellig niercelcarcinoom werden verdeeld in groepen met een hoge en lage ARHGAP22-expressie op basis van de mediane expressiewaarde, waarna een analyse van de differentiële expressie werd uitgevoerd. In totaal waren 334 genen upgereguleerd en 38 genen downgereguleerd in de groep met hoge expressie (Figuur 6A). Heatmap-analyse onthulde duidelijke expressiepatronen tussen de groepen met hoge en lage ARHGAP22-expressie, wat aantoont dat de geïdentificeerde differentieel tot expressie gebrachte genen de twee groepen van elkaar scheidden (Figuur 6B).
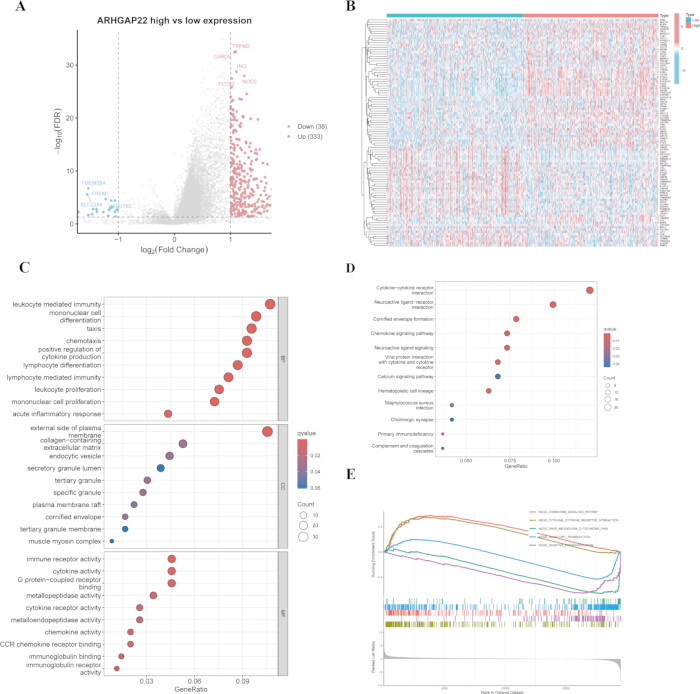
Figuur 6: ARHGAP22-geassocieerde differentieel tot expressie gebrachte genen en functionele verrijking. (A) Volcano plot van differentieel tot expressie gebrachte genen tussen de groepen met een hoge en lage ARHGAP22-expressie. (B) Heatmap van differentieel tot expressie gebrachte genen. (C) Gene Ontology-verrijkingsanalyse. (D) Kyoto Encyclopedia of Genes and Genomes-padverrijkingsanalyse. (E) Gene Set Enrichment Analysis die paden toont die verrijkt zijn in de groep met een hoge ARHGAP22-expressie. Klik hier om een grotere versie van deze figuur te bekijken.
Functionele verrijking van differentieel tot expressie gebrachte genen geassocieerd met ARHGAP22
Een functionele verrijkingsanalyse werd uitgevoerd om de biologische processen te karakteriseren die geassocieerd zijn met de differentieel tot expressie gebrachte genen. Gene Ontology-analyse toonde verrijking aan in immuun-gerelateerde biologische processen, waaronder leukocyten-gemedieerde immuniteit, chemotaxis, cytokinenproductie, en differentiatie en proliferatie van lymfocyten. Op het niveau van de cellulaire componenten werd verrijking waargenomen in de extracellulaire matrix, secretoire korrels en plasma-membraangeassocieerde structuren. Op het niveau van de moleculaire functie werd verrijking waargenomen voor cytokinenactiviteit, chemokine-receptorbinding en metallopeptidase-gerelateerde activiteiten (Figuur 6C). Analyse via de Kyoto Encyclopedia of Genes and Genomes toonde significante verrijking aan in cytokine-cytokinereceptorinteractie, chemokine-signalering, calciumsignalering, en infectie- en immuniteits-gerelateerde pathways (Figuur 6D). Gene Set Enrichment Analysis identificeerde daarnaast meerdere immuun-gerelateerde pathways die verrijkt waren in de groep met een hoge ARHGAP22-expressie (Figuur 6E).
ARHGAP22 en de immuunmicro-omgeving bij heldercellig niercelcarcinoom
CIBERSORT-gebaseerde analyse van de geschatte fracties immuuncellen toonde significante verschillen aan tussen de ARHGAP22-hoge en ARHGAP22-lage groepen (Figuur 7A). Na correctie voor de false discovery rate vertoonde de ARHGAP22-hoge groep hogere geschatte fracties M2-macrofagen en regulatoire T-cellen en lagere geschatte fracties naïeve B-cellen, rustende mestcellen en geactiveerde dendritische cellen. Correlatieanalyse toonde aan dat de expressie van ARHGAP22 positief geassocieerd was met M2-macrofagen en regulatoire T-cellen en negatief geassocieerd met naïeve B-cellen, rustende mestcellen en geactiveerde dendritische cellen (Figuur 7B). Deze op CIBERSORT gebaseerde schattingen gaven aan dat een verhoogde expressie van ARHGAP22 geassocieerd was met een immunosuppressief profiel bij ccRCC.
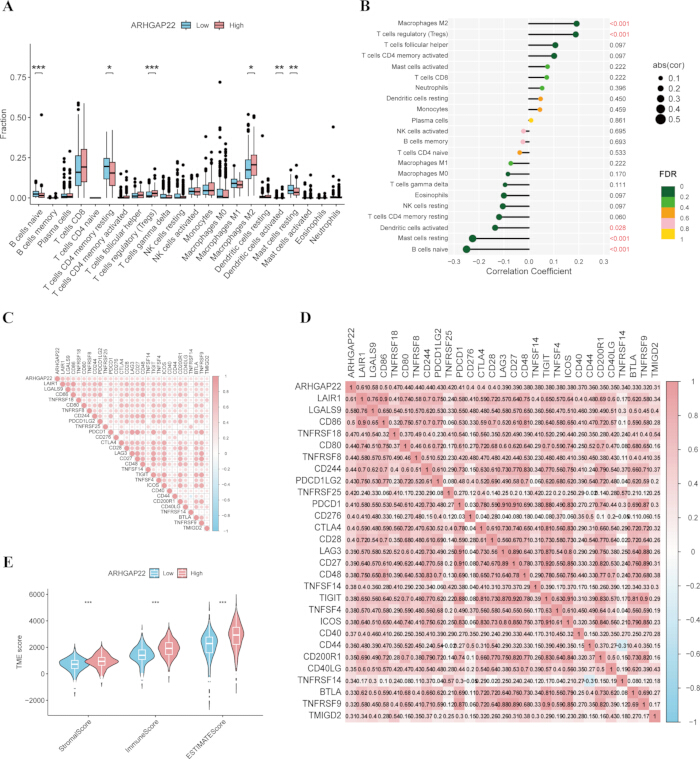
Figuur 7: Associatie tussen ARHGAP22-expressie en kenmerken van de immuunmicro-omgeving bij heldercellig niercelcarcinoom. (A) Verschillen in door CIBERSORT geschatte immuuncelfracties tussen de ARHGAP22-hoge en ARHGAP22-lage groepen. (B) Correlaties tussen ARHGAP22-expressie en door CIBERSORT geschatte immuuncelfracties. (C) Correlatie-heatmap die associaties toont tussen ARHGAP22-expressie en immuun-checkpointgenen. (D) Correlatiematrix van ARHGAP22 en immuun-checkpointmoleculen. (E) Verschillen in StromalScore, ImmuneScore en ESTIMATEScore tussen de ARHGAP22-hoge en ARHGAP22-lage groepen, berekend met het ESTIMATE-algoritme. *P < 0.05; **P < 0.01; ***P < 0.001. Klik hier om een grotere versie van deze figuur te bekijken.
ARHGAP22, immuuncheckpoints en componenten van de tumormicro-omgeving
Een hoge expressie van ARHGAP22 was positief geassocieerd met verschillende immuuncheckpoint-genen, waaronder PDCD1LG2, CTLA4, LAG3, TIGIT en ICOS (Figuur 7C, D), wat wijst op een potentiële associatie met kenmerken die gerelateerd zijn aan immuunontwijking. ESTIMATE-analyse toonde daarnaast aan dat de StromalScore, ImmuneScore en ESTIMATEScore aanzienlijk hoger waren in de groep met een hoge ARHGAP22-expressie (Figuur 7E), wat duidt op een toename van stromale en immuuncomponenten binnen de tumormicro-omgeving. Deze bevindingen gaven aan dat de expressie van ARHGAP22 geassocieerd was met via CIBERSORT geschatte immuuncelfracties, immuuncheckpoint-expressie en een immunosuppressief profiel van de tumormicro-omgeving bij ccRCC.
ARHGAP22 en computationeel voorspelde gevoeligheid voor doelgerichte medicatie
De associatie tussen de expressie van ARHGAP22 en de computationeel voorspelde gevoeligheid voor doelgerichte medicatie werd geëvalueerd door de voorspelde halfmaximale inhiberende concentratiewaarden tussen de groepen met een hoge en lage expressie te vergelijken (Figuur 8A–I). De groep met een lage expressie vertoonde significant lagere voorspelde halfmaximale inhiberende concentratiewaarden voor axitinib, sorafenib, savolitinib, foretinib, cediranib, alpelisib, buparlisib, afuresertib en ipatasertib. Lagere voorspelde halfmaximale inhiberende concentratiewaarden duidden op een grotere computationeel voorspelde gevoeligheid. Deze bevindingen suggereerden een associatie tussen een lagere expressie van ARHGAP22 en een grotere voorspelde gevoeligheid voor de geëvalueerde doelgerichte middelen. De resultaten waren computationele voorspellingen en vormden geen experimenteel of klinisch gevalideerde medicijnresponsen.
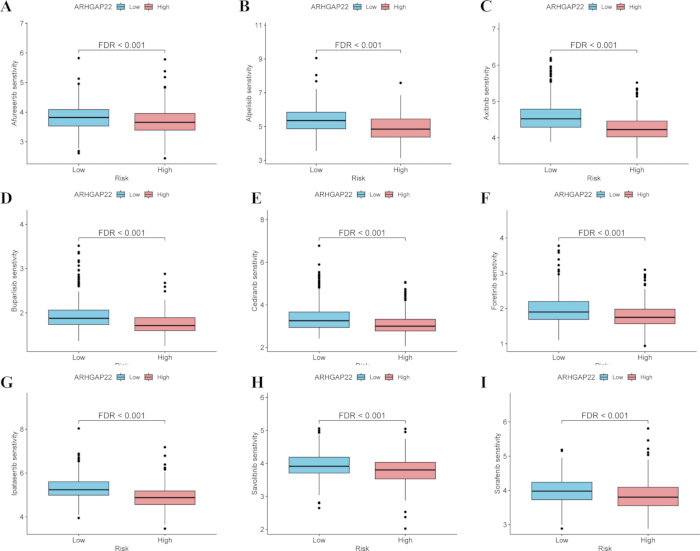
Figuur 8: Associatie tussen ARHGAP22-expressie en computationeel voorspelde gevoeligheid voor doelgerichte geneesmiddelen bij heldercellig niercelcarcinoom. (A–I) Vergelijking van computationeel voorspelde waarden voor de halfmaximale inhiberende concentratie voor respectievelijk axitinib, sorafenib, savolitinib, foretinib, cediranib, alpelisib, buparlisib, afuresertib en ipatasertib, tussen de groepen met een hoge en lage ARHGAP22-expressie. Lagere voorspelde waarden voor de halfmaximale inhiberende concentratie duiden op een grotere voorspelde gevoeligheid voor het geneesmiddel. Klik hier om een grotere versie van deze figuur te bekijken.
DATABESCHIKBAARHEID:
De transcriptomische en klinische gegevens die in deze studie zijn geanalyseerd, zijn verkregen uit het publiek toegankelijke The Cancer Genome Atlas Kidney Renal Clear Cell Carcinoma (TCGA-KIRC) project (https://portal.gdc.cancer.gov/). Externe validatiegegevens voor expressie en overleving zijn verkregen uit de Gene Expression Omnibus dataset GSE167573. Eiwitexpressiegegevens zijn opgehaald uit de Human Protein Atlas (https://www.proteinatlas.org/). Pan-cancer expressiegegevens zijn geanalyseerd met TIMER2.0, en externe validatie is uitgevoerd via het BEST-platform. Referentiegegevens over genevatligheid zijn verkregen uit de Genomics of Drug Sensitivity in Cancer 2 dataset, en genensets die zijn gebruikt voor verrijkingsanalyse zijn verkregen uit de Molecular Signatures Database. De originele datasets zijn publiek toegankelijk via dedesbetreffende repositories en platforms. De R-scripts die zijn gebruikt voor gegevensverwerking, statistische analyse en visualisatie zijn opgenomen als Supplementary File 1. Verwerkte resultaten zijn opgenomen als Supplementary Table 1, met de volledige resultaten van de differentieel expressieanalyse; Supplementary Table 2, met de Gene Ontology verrijkingsresultaten; en Supplementary Table 3, met de Kyoto Encyclopedia of Genes and Genomes pathway verrijkingsresultaten.
Aanvullende tabel 1: Volledige resultaten van de differentiële expressieanalyse. Dit bestand bevat de volledige lijst van differentieel tot expressie gebrachte genen die zijn geïdentificeerd tussen de groepen met een hoge en lage ARHGAP22-expressie, inclusief gen-identificatoren, expressiewaarden per groep, log2 fold changes, P-waarden, P-waarden gecorrigeerd voor de false discovery rate en de regulatierichting. Klik hier om dit bestand te downloaden.
Aanvullende tabel 2: Resultaten van de Gene Ontology-verrijkingsanalyse. Dit bestand bevat de volledige resultaten van de Gene Ontology-verrijking voor differentieel tot expressie gebrachte genen geassocieerd met ARHGAP22, inclusief categorieën voor biologische processen, cellulaire componenten en moleculaire functies, samen met verrijkingsstatistieken, P-waarden, gecorrigeerde P-waarden, genaantallen en bijbehorende gen-identificatoren. Klik hier om dit bestand te downloaden.
Aanvullende tabel 3: Resultaten van de pathway-enrichmentanalyse van de Kyoto Encyclopedia of Genes and Genomes. Dit bestand bevat de volledige resultaten van de Kyoto Encyclopedia of Genes and Genomes pathway-enrichment voor differentieel tot expressie gebrachte genen geassocieerd met ARHGAP22, inclusief pathway-identificatoren en -namen, enrichment-statistieken, P-waarden, gecorrigeerde P-waarden, q-waarden, genaantallen en bijbehorende gen-identificatoren. Klik hier om dit bestand te downloaden.
Aanvullend bestand 1: R-scripts voor gegevensverwerking, statistische analyse en visualisatie. Dit bestand bevat de R-scripts die zijn gebruikt voor gegevensvoorbewerking, expressieanalyse, overlevingsanalyse, clinicopathologische associatieanalyse, co-expressieanalyse, differentiële expressieanalyse, functionele verrijkingsanalyse, immuuninfiltratieanalyse, voorspelling van druggevoeligheid en het genereren van figuren. Klik hier om dit bestand te downloaden.
Discussie
Niercelcarcinoom (RCC) is een van de meest voorkomende maligniteiten van het urinair systeem, waarbij heldercellig niercelcarcinoom (ccRCC) het dominante histologische subtype is en een belangrijke bijdrager aan de RCC-gerelateerde mortaliteit. De incidentie van RCC is de afgelopen jaren over het algemeen toegenomen, met opvallende geografische variatie. Vastgestelde risicofactoren zijn onder meer roken, obesitas, hypertensie en chronische nierziekte3˒4. Ondanks vorderingen in diagnostiek en behandeling blijft ccRCC klinisch heterogeen; sommige patiënten presenteren zich met een gevorderd of gemetastaseerd ziektebeeld, en postoperatieve recidieven en metastasen op afstand komen veelvuldig voor2˒5˒26. De identificatie van moleculaire biomarkers die geassocieerd zijn met tumorgedrag en prognose blijft daarom een belangrijk doel in ccRCC-onderzoek. De huidige analyse toonde aan dat ARHGAP22 upgereguleerd was in ccRCC en geassocieerd was met een slechtere algehele overleving, ongunstige clinicopathologische kenmerken, immuun-gerelateerde transcriptomische veranderingen, een immunosuppressief tumor-micro-omgevingsprofiel en verschillen in computationeel voorspelde gevoeligheid voor gerichte therapieën. Deze bevindingen ondersteunen de potentiële waarde van ARHGAP22 als kandidaat-prognostische en immuun-gerelateerde biomarker, hoewel de klinische bruikbaarheid en causaliteit nog niet zijn vastgesteld.
ARHGAP22 codeert voor een Rho GTPase-activerend eiwit dat betrokken is bij de regulatie van het cytoskelet en de celmotiliteit. Het eiwit bevat een plekstrine-homologiedomein, een RhoGAP-domein en een C-terminale coiled-coil regio en kan interageren met 14-3-3 eiwitten, wat wijst op een rol bij groeifactor-gereguleerde celmigratie22. Als FilGAP-gerelateerd eiwit neemt ARHGAP22 deel aan de antagonistische regulatie van de RhoA–Rac1-as en aan de controle van celmigratiemodi21˒27. ARHGAP22 is primair gelokaliseerd in endosomen en kan worden getransporteerd naar membraanruffles of het plasmamembraan, waar het de Rac-afhankelijke lamellipodiamevorming en celspreiding remt; de subcellulaire lokalisatie is nauw gerelateerd aan de RacGAP-activiteit20˒23. Er zijn ook verbanden met tumoren gerapporteerd. Bij ccRCC is ARHGAP22 geïdentificeerd als een kandidaatmolecuul in transcriptionele analyses gerelateerd aan remming van het bromodomein-bevattend eiwit 4 en is het geassocieerd met een slechtere algehele overleving28. Leden van de ARHGAP-familie zijn daarnaast gekoppeld aan tumorbevorderende immuuninfiltratie en ziekteprogressie bij blaaskanker25, veranderde expressie en exonvariatie bij acute myeloïde leukemie24, en een differentiële respons op bevacizumab bij metastatisch colorectaal carcinoom29.
De huidige bevindingen waren consistent met deze observaties. De expressie van ARHGAP22 nam toe bij een gevorderde T-, N- en M-classificatie, histologische graad en klinisch stadium, en een hogere expressie was geassocieerd met een kortere algehele overleving. Rac-signalering is eerder aangetoond als stimulerend voor de groei van ccRCC en angiogene switching16, terwijl het Rho GTPase/Rho-geassocieerde coiled-coil-bevattende proteïnekinase-pad is geassocieerd met maligne gedrag bij ccRCC17. De waargenomen upregulatie van ARHGAP22 kan daarom moleculaire veranderingen weerspiegelen die geassocieerd zijn met agressieve tumorfenotypes. Co-expressie- en differentiële expressieanalyses toonden verder aan dat ARHGAP22 geassocieerd was met een breed transcriptioneel netwerk. Positieve correlaties werden waargenomen met genen waaronder FMNL1, CARD9 en TRPM2, terwijl negatieve correlaties werden waargenomen met genen waaronder BSND en FOXI1. Resultaten van Gene Ontology, Kyoto Encyclopedia of Genes and Genomes en Gene Set Enrichment Analysis toonden verrijking in leukocyten-gemedieerde immuniteit, chemotaxis, cytokineproductie, lymfocytdifferentiatie en -proliferatie, cytokine-receptorinteracties en chemokine-signalering. Chemokine-netwerken dragen bij aan de rekrutering van immuuncellen, tumorgroei en metastase bij RCC30, terwijl verrijking van immuun-gerelateerde paden is geassocieerd met een slechte prognose en een gewijzigde tumormicro-omgeving bij ccRCC31. Heldercelig niercelcarcinoom vertoont daarnaast duidelijke immuun transcriptionele signatures die geassocieerd zijn met de klinische uitkomst en de complexiteit van de immuunmicro-omgeving32. Gelijkaardige relaties tussen aberrante genexpressie, verrijking van immuunpaden, slechte prognose en complexe co-expressiepatronen zijn gerapporteerd bij andere maligniteiten33.
De expressie van ARHGAP22 was ook geassocieerd met verschillen in de immuunmicro-omgeving van de tumor. De groep met een hoge expressie vertoonde, na correctie voor de false discovery rate, hogere geschatte fracties van regulatoire T-cellen en M2-macrofagen en lagere geschatte fracties van naïeve B-cellen, rustende mestcellen en geactiveerde dendritische cellen. Er werden ook positieve associaties waargenomen tussen de expressie van ARHGAP22 en verschillende immuun-checkpointmoleculen, samen met hogere waarden voor de ImmuneScore, StromalScore en ESTIMATEScore. Heldercellig niercelcarcinoom wordt gekenmerkt door aanzienlijke immuuninfiltratie, maar dit kenmerk duidt niet noodzakelijkerwijs op een effectieve antitumorrespons34. Disfunctionele toestanden van immuuncellen en immunosuppressieve kenmerken kunnen de effectiviteit van immuun-checkpointblokkade beperken35. Regulatoire T-cellen en M2-macrofagen zijn geassocieerd met immunosuppressie, tumorprogressie en een slechte prognose bij RCC36˒37, terwijl een verhoogde expressie van immuun-checkpoints processen kan weerspiegelen die verband houden met immuunevacuatie38. De huidige resultaten suggereren daarom dat een hoge expressie van ARHGAP22 niet simpelweg geassocieerd is met een grotere immuuninfiltratie, maar met een immuunprofiel dat kenmerken bevat die gewoonlijk gekoppeld zijn aan immunosuppressie. Deze interpretatie blijft inferentieel omdat de schattingen van immuuncellen zijn afgeleid van bulk RNA-sequencinggegevens en een enkele computationele deconvolutiemethode.
Er werden ook verschillen waargenomen in de computationeel voorspelde druggevoeligheid tussen de ARHGAP22-expressiegroepen. Moleculaire kenmerken met een hoog risico zijn eerder geassocieerd met veranderde immuuninfiltratie, verrijking van immuunpaden en een differentiële drugrespons39. Er is ook gerapporteerd dat immuungerelateerde gensignaturen in ccRCC overleving stratificeren en differentiële responsen op immunotherapie en doelgerichte therapie voorspellen40˒41. In de huidige analyse had de groep met een lage ARHGAP22-expressie lagere voorspelde waarden voor de halfmaximale inhiberende concentratie voor verschillende doelgerichte middelen. Deze bevindingen duiden op een associatie tussen ARHGAP22-expressie en computationeel voorspelde druggevoeligheid, maar tonen geen feitelijke behandelrespons of klinisch voordeel aan. Verschillende methodologische keuzes ondersteunden de analytische consistentie, waaronder filtering van de monsterkwaliteit, het gebruik van een uniforme mediaangebaseerde expressiedrempel, betrouwheidsfiltering van CIBERSORT-resultaten en correctie voor de false discovery rate bij meervoudige vergelijkingen. Desalniettemin moet de voorspelde druggevoeligheid als verkennend worden geïnterpreteerd, en is onafhankelijke validatie met experimenteel gemeten of klinisch waargenomen drugresponsgegevens vereist.
Er moeten enkele beperkingen in overweging worden genomen. Hoewel GSE167573 externe validatie bood van de ARHGAP22-expressie en de associaties daarvan met overleving, blijft validatie in grotere, multicentrische klinische cohorten noodzakelijk. De analyses waren grotendeels gebaseerd op retrospectieve openbare datasets en bulk RNA-sequencingdata; bijgevolg kon de cellulaire bron van de ARHGAP22-expressie niet worden onderscheiden tussen tumorcellen, stromale cellen en infiltrerende immuuncellen. Single-cell RNA-sequencing, multiplex immunofluorescentie of ruimtelijke transcriptomica zouden helpen om deze beperking aan te pakken. Immuuncelinfiltratie, expressie van immuuncheckpoints en druggevoeligheid werden computationeel afgeleid en representeren mogelijk niet direct de biologische functie of de klinische behandelrespons. Er is geen onafhankelijke immuun-deconvolutiemethode, institutioneel immunohistochemisch cohort of experimentele perturbatieanalyse opgenomen. Daarnaast leggen de waargenomen associaties geen causale relaties vast tussen ARHGAP22-expressie, co-expressie van genen, immuuncelinfiltratie en drugrespons. Mechanistische experimenten, prospectieve klinische validatie en vergelijkingen van modelprestaties zullen daarom vereist zijn vóór klinische vertaling. Over het geheel genomen biedt de workflow een reproduceerbaar kader voor het evalueren van kandidaat-biomarkers met behulp van openbare moleculaire datasets, maar de biologische en klinische relevantie van ARHGAP22 vereist verdere onafhankelijke bevestiging.
Openbaarmakingen
De auteurs verklaren geen belangenconflicten.
Dankbetuigingen
In deze studie zijn openbaar beschikbare gegevens van The Cancer Genome Atlas (TCGA) gebruikt. Het TCGA Research Network wordt erkend voor het genereren en verstrekken van deze bronnen.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| circlize R package | Version 0.4.16 | CRAN | Gebruikt voor circos plots en chord-diagrammen. |
| clusterProfiler R package | Version 4.12.0 | Bioconductor | Gebruikt voor GO-, KEGG- en GSEA-verrijkingsanalyses. |
| ComplexHeatmap R package | Version 2.20.0 | Bioconductor | Gebruikt voor complexe heatmap-visualisatie en klinische annotatie-heatmaps. |
| e1071 R package | Version 1.7.16 | CRAN | Gebruikt voor support vector regressie in CIBERSORT-gerelateerde analyse. |
| enrichplot R package | Version 1.24.0 | Bioconductor | Gebruikt voor visualisatie van resultaten van functionele verrijking. |
| estimate R package | Version 1.0.13 | R package/source package | Gebruikt voor het berekenen van stroma-, immuun- en ESTIMATE-scores. |
| ggExtra R package | Version 0.10.1 | CRAN | Gebruikt voor scatterplots met marginale dichtheidsdistributies. |
| ggplot2 R package | Version 3.5.1 | CRAN | Gebruikt voor algemene datavisualisatie. |
| ggpubr R package | Version 0.6.0 | CRAN | Gebruikt voor boxplots, violin plots en statistische vergelijkingen. |
| ggrepel R package | Version 0.9.5 | CRAN | Gebruikt voor niet-overlappende tekstlabels in volcano plots. |
| limma R package | Version 3.60.4 | Bioconductor | Gebruikt voor preprocessing van expressiedata en analyse van differentiële expressie. |
| oncoPredict R package | Version 1.2 | CRAN | Gebruikt om druggevoeligheid te voorspellen op basis van transcriptomische data. |
| org.Hs.eg.db R package | Version 3.19.1 | Bioconductor | Gebruikt voor genannotatie en conversie tussen gensymbolen en Entrez ID's. |
| pheatmap R package | Version 1.0.12 | CRAN | Gebruikt voor heatmap-visualisatie. |
| preprocessCore R package | Version 1.68.0 | Bioconductor | Gebruikt voor kwantielnormalisatie in CIBERSORT-gerelateerde analyse. |
| R software | Version 4.4.0 | R Foundation for Statistical Computing | Gebruikt voor statistische analyse en visualisatie. |
| RColorBrewer R package | Version 1.1.3 | CRAN | Gebruikt voor het genereren van kleurenpaletten bij visualisatie. |
| regplot R package | Version 1.1 | CRAN | Gebruikt voor nomogram-visualisatie. |
| reshape2 R package | Version 1.4.4 | CRAN | Gebruikt voor het herschikken van data vóór visualisatie. |
| rms R package | Version 6.8.1 | CRAN | Gebruikt voor constructie van prognostische modellen, kalibratieanalyse en nomogram-gerelateerde analyse. |
| scales R package | Version 1.4.0 | CRAN | Gebruikt voor schaal aanpassing en instellingen voor kleurtransparantie. |
| survival R package | Version 3.5.8 | CRAN | Gebruikt voor Cox-regressie en Kaplan-Meier overlevingsanalyse. |
| survminer R package | Version 0.4.9 | CRAN | Gebruikt voor visualisatie van Kaplan-Meier overlevingscurves. |
| timeROC R package | Version 0.4 | CRAN | Gebruikt voor tijdsonafhankelijke ROC-curve analyse. |
Referenties
- Winter TD et al. Using Mendelian randomization to investigate etiologic heterogeneity across renal cell carcinoma subtypes. Int J Epidemiol. 2025;54(6):dyaf177. https://doi.org/10.1093/ije/dyaf177
- Hsieh JJ et al. Renal cell carcinoma. Nat Rev Dis Primers. 2017;3:17009. https://doi.org/10.1038/nrdp.2017.9
- Capitanio U et al. Epidemiology of renal cell carcinoma. Eur Urol. 2019;75(1):74-84.
- Siegel RL, Miller KD, Fuchs HE, Jemal A. Cancer statistics, 2022. CA Cancer J Clin. 2022;72(1):7-33.
- Wiechno P et al. Contemporary treatment of metastatic renal cell carcinoma. Med Oncol. 2018;35(12):156. https://doi.org/10.1007/s12032-018-1217-1
- Chen W et al. Targeting renal cell carcinoma with a HIF-2 antagonist. Nature. 2016;539(7627):112-117.
- Rydzanicz M, Wrzesiński T, Bluyssen HA, Wesoły J. Genomics and epigenomics of clear cell renal cell carcinoma: recent developments and potential applications. Cancer Lett. 2013;341(2):111-126.
- Barata PC, Rini BI. Treatment of renal cell carcinoma: current status and future directions. CA Cancer J Clin. 2017;67(6):507-524.
- Chowdhury N, Drake CG. Kidney cancer: an overview of current therapeutic approaches. Urol Clin North Am. 2020;47(4):419-431.
- Gulati S, Vaishampayan U. Current state of systemic therapies for advanced renal cell carcinoma. Curr Oncol Rep. 2020;22(3):26. https://doi.org/10.1007/s11912-020-0892-1
- Haga RB, Ridley AJ. Rho GTPases: regulation and roles in cancer cell biology. Small GTPases. 2016;7(4):207-221.
- Sahai E, Marshall CJ. RHO-GTPases and cancer. Nat Rev Cancer. 2002;2(2):133-142.
- Bustelo XR. RHO GTPases in cancer: known facts, open questions, and therapeutic challenges. Biochem Soc Trans. 2018;46(3):741-760.
- Crosas-Molist E et al. Rho GTPase signaling in cancer progression and dissemination. Physiol Rev. 2022;102(1):455-510.
- Li H, Peyrollier K, Kilic G, Brakebusch C. Rho GTPases and cancer. BioFactors. 2014;40(2):226-235.
- Goka ET, Chaturvedi P, Lopez DTM, Lippman ME. Rac signaling drives clear cell renal carcinoma tumor growth by priming the tumor microenvironment for an angiogenic switch. Mol Cancer Ther. 2020;19(7):1462-1473.
- Thompson JM, Landman J, Razorenova OV. Targeting the RhoGTPase/ROCK pathway for the treatment of VHL/HIF pathway-driven cancers. Small GTPases. 2020;11(1):32-38.
- Feng J et al. RhoJ promotes the progression of clear cell renal cell carcinoma via .the TNF-α/NF-κB axis. Transl Androl Urol. 2025;14(7):1849-1864.
- Guo K et al. Activation of RHO-GTPase gene pattern correlates with adverse clinical outcome and immune microenvironment in clear cell renal cell carcinoma. Clin Exp Med. 2025;25(1):67. https://doi.org/10.1007/s10238-025-01593-3
- Mori M, Saito K, Ohta Y. ARHGAP22 localizes at endosomes and regulates actin cytoskeleton. PLoS One. 2014;9(6):e100271. https://doi.org/10.1371/journal.pone.0100271
- Nakamura F. FilGAP and its close relatives: a mediator of Rho-Rac antagonism that regulates cell morphology and migration. Biochem J. 2013;453(1):17-25.
- Hu SH et al. The weak complex between RhoGAP protein ARHGAP22 and signal regulatory protein 14-3-3 has 1:2 stoichiometry and a single peptide binding mode. PLoS One. 2012;7(8):e41731. https://doi.org/10.1371/journal.pone.0041731
- Mori M et al. Endosomal localization of RacGAP protein ARHGAP22 regulates its GAP activity in human melanoma cells. Anticancer Res. 2022;42(12):5763-5771.
- El-Masry OS, Alamri AM, Alzahrani F, Alsamman K. ADAMTS14, ARHGAP22, and EPDR1 as potential novel targets in acute myeloid leukaemia. Heliyon. 2022;8(3):e09065. https://doi.org/10.1016/j.heliyon.2022.e09065
- Yang C et al. Transcriptomic analysis identified ARHGAP family as a novel biomarker associated with tumor-promoting immune infiltration and nanomechanical characteristics in bladder cancer. Front Cell Dev Biol. 2021;9:657219. https://doi.org/10.3389/fcell.2021.657219
- Schiavoni V et al. Recent advances in the management of clear cell renal cell carcinoma: novel biomarkers and targeted therapies. Cancers (Basel). 2023;15(12):3207. https://doi.org/10.3390/cancers15123207
- Sanz-Moreno V et al. Rac activation and inactivation control plasticity of tumor cell movement. Cell. 2008;135(3):510-523.
- Sakaguchi T et al. Bromodomain protein BRD4 inhibitor JQ1 regulates potential prognostic molecules in advanced renal cell carcinoma. Oncotarget. 2018;9(33):23003-23017.
- Stránská J et al. Copy number variation and clinical response to chemotherapy and bevacizumab in Czech patients with metastatic colorectal cancer. Klin Onkol. 2024;37(4):277-285.
- Parihar JS, Tunuguntla HS. Role of chemokines in renal cell carcinoma. Rev Urol. 2014;16(3):118-121.
- Chen Z, Wu R, Ma J, Zheng J. C chemokines are prognostic biomarkers correlated with diverse immune cell infiltrations in clear cell renal cell carcinoma. Transl Cancer Res. 2022;11(8):2501-2522.
- Şenbabaoğlu Y et al. Tumor immune microenvironment characterization in clear cell renal cell carcinoma identifies prognostic and immunotherapeutically relevant messenger RNA signatures. Genome Biol. 2016;17(1):231. https://doi.org/10.1186/s13059-016-1092-z
- Song DM et al. LIG1 is a novel marker for bladder cancer prognosis: evidence based on experimental studies, machine learning, and single-cell sequencing. Front Immunol. 2024;15:1419126. https://doi.org/10.3389/fimmu.2024.1419126
- Vuong L, Kotecha RR, Voss MH, Hakimi AA. Tumor microenvironment dynamics in clear-cell renal cell carcinoma. Cancer Discov. 2019;9(10):1349-1357.
- Burgers FH et al. Immunological features of clear-cell renal-cell carcinoma and resistance to immune checkpoint inhibitors. Nat Rev Nephrol. 2025;21(10):687-701.
- Davidsson S et al. Infiltration of M2 macrophages and regulatory T cells plays a role in recurrence of renal cell carcinoma. Eur Urol Open Sci. 2020;20:62-71.
- Zhang X et al. Tumor-associated M2 macrophages in the immune microenvironment influence the progression of renal clear cell carcinoma by regulating M2 macrophage-associated genes. Front Oncol. 2023;13:1157861. https://doi.org/10.3389/fonc.2023.1157861
- Tronik-Le Roux D et al. Comprehensive landscape of immune checkpoints uncovered in clear cell renal cell carcinoma reveals new and emerging therapeutic targets. Cancer Immunol Immunother. 2020;69(7):1237-1252.
- Hong J et al. A zinc metabolism-related gene signature for predicting prognosis and characteristics of breast cancer. Front Immunol. 2023;14:1276280. https://doi.org/10.3389/fimmu.2023.1276280
- Xu W et al. Prognostic immunophenotyping clusters of clear cell renal cell carcinoma defined by the unique tumor immune microenvironment. Front Cell Dev Biol. 2021;9:785410. https://doi.org/10.3389/fcell.2021.785410
- Gu J et al. A novel immune-related gene signature for predicting immunotherapy outcomes and survival in clear cell renal cell carcinoma. Sci Rep. 2023;13(1):18922. https://doi.org/10.1038/s41598-023-45966-8