Een tijdopgeloste FRET-assay monitort de klievingskinetiek van het Mpro-substraat om vast te stellen of PROTACs de enzymatische activiteit beïnvloeden, waardoor functionele scheiding tussen degradatie- en inhibitoreffecten mogelijk wordt.
Methodenartikel
Een tijdopgeloste FRET-activiteitsassay om enzymatische inhibitie te onderscheiden van PROTAC-gemedieerde degradatie van SARS-CoV-2 Mpro
In dit artikel
Samenvatting
Samenvatting
Proteolysis-targeting chimeras (PROTACs) blijken een veelbelovende strategie voor de ontwikkeling van antivirale geneesmiddelen en onderscheiden zich mechanistisch van klassieke kleine-molecuulremmers. Veel PROTAC-ontwerpen die gericht zijn op virale proteasen, zoals het hoofdprotease (Mpro) van SARS-CoV-2, maken gebruik van warheads afgeleid van active-site-remmers, waardoor proximity-induced degradatie wordt gecombineerd met potentiële enzymatische inhibitie. Deze dubbele functionaliteit bemoeilijkt het experimentele onderscheid tussen effecten gestuurd door degradatie en directe inhibitie van de katalytische activiteit op de virale replicatie. Om dit aan te pakken, hebben we een assay gebaseerd op fluorescence resonance energy transfer (FRET) opgezet om de katalytische activiteit van recombinant Mpro te kwantificeren in de aanwezigheid van remmers en degraders. De assay maakt gebruik van een gequencht fluorogeen peptide-substraat (MI-2822) dat de canonieke Mpro-splitsingssequentie bevat, geflankeerd door een fluorofoor en een quencher. Proteolytische splitsing resulteert in een tijdsafhankige toename van de fluorescentie, wat continue kinetische monitoring van de enzymactiviteit mogelijk maakt. Recombinant Mpro tot expressie gebracht in Escherichia coli wordt gezuiverd en geïncubeerd met het FRET-substraat onder gedefinieerde buffercondities, waarna de fluorescentie in de tijd wordt geregistreerd om enzymatische activiteitsprofielen af te leiden. De assay wordt gecontroleerd met de klinisch goedgekeurde active-site-remmer nirmatrelvir, die de substraatsplitsing efficiënt onderdrukt. In tegenstelling hiermee verminderen PROTACs die gericht zijn op Mpro buiten de katalytische spleet de toename van de fluorescentie niet substantieel, wat aangeeft dat zij de enzymatische activiteit onder de geteste condities niet meetbaar inhiberen. Dit protocol biedt een robuuste en reproduceerbare aanpak om onderscheid te maken tussen enzymatische inhibitie en degradatie-geassocieerde mechanismen. Het is breed toepasbaar voor de mechanistische karakterisering van PROTACs en andere bifunctionele moleculen die gericht zijn op virale proteasen.
Inleiding
Gerichte eiwitafbraak (targeted protein degradation, TPD) maakt gebruik van het cellulaire ubiquitine-proteasoomsysteem (UPS) om selectief eiwitten van belang te elimineren. Deze strategie is gebaseerd op heterobifunctionele moleculen, algemeen aangeduid als proteolysis-targeting chimeras (PROTACs), die gelijktijdig binden aan een doeleiwit en een E3-ubiquitine-ligase2. E3-ubiquitine-ligasen vormen een grote en diverse klasse cellulaire enzymen3 die de ubiquitinering van substraateiwitten katalyseren, waardoor deze worden gemarkeerd voor proteasomale afbraak4.
PROTACs bestaan uit een ligand voor het doeleiwit en een ligand voor een E3-ligase, verbonden via een chemische linker5. Door nabijheid te induceren tussen het doeleiwit en het E3-ligase, bevorderen PROTACs de vorming van een ternair complex dat ubiquitineoverdracht en de daaropvolgende degradatie van het doeleiwit door het proteasoom mogelijk maakt6,7. Vergeleken met klassieke kleine-molecule-remmers biedt deze benadering verschillende voordelen8. PROTACs kunnen katalytisch werken, wat een efficiënte uitputting van het doelwit bij lagere concentraties mogelijk maakt, en ze kunnen bestaande liganden of remmers gebruiken als targeterende groepen5. Bovendien kunnen degradatiegebaseerde strategieën effectief blijven in de aanwezigheid van resistentieverLENende mutaties9,10 en kunnen ze worden toegepast op eiwitten die moeilijk direct te remmen zijn, zoals eiwitten die geen goed gedefinieerde bindingspockets hebben11.
In de context van de ontwikkeling van antivirale geneesmiddelen zijn veel gerapporteerde PROTACs die zich richten op virale eiwitten afhankelijk van warheads die zijn afgeleid van actieve-site-remmers10,12,13,14. Als gevolg hiervan combineren deze moleculen vaak enzymatische inhibitie met degradatie-gestuurde uitputting van het doelwit, wat de mechanistische interpretatie van de antivirale activiteit compliceert. Hoewel cellulaire antivirale assays het gecombineerde resultaat van meerdere processen integreren, waaronder doeldegradatie en inhibitie van virale replicatie, maken ze vaak geen duidelijk onderscheid mogelijk tussen inhibitie-gestuurde en degradatie-gestuurde effecten. Bovendien missen veel virale eiwitten duidelijk gedefinieerde bindingspockets of katalytische sites, wat hun toegankelijkheid voor huidige PROTAC-ontwerpstrategieën beperkt.
Om deze uitdaging aan te pakken, hebben we een assay ontwikkeld op basis van fluorescence resonance energy transfer (FRET) met gebruik van een SARS-CoV-2 Mpro-peptidesubstraat, waardoor tijdopgeloste monitoring van de enzymatische activiteit mogelijk wordt. Deze aanpak maakt het mogelijk om onderscheid te maken tussen PROTAC-geassocieerde effecten en directe enzymatische inhibitie. Met behulp van deze assay hebben we een Mpro-targeterende degrader geëvalueerd die bindt buiten de katalytische spleet en onder de geteste omstandigheden de proteaseactiviteit niet meetbaar beïnvloedt, terwijl de degradatiecapaciteit behouden blijft. Parallel daaraan werd de klinisch goedgekeurde Mpro-inhibitor nirmatrelvir als controle gebruikt, wat resulteerde in een uitgesproken vermindering van de enzymatische activiteit.
Samenvattend biedt deze assay een robuuste methode om onderscheid te maken tussen enzymatische inhibitie en effecten gerelateerd aan degradatie. Het is bijzonder waardevol voor het karakteriseren van degraders die gericht zijn op enzymatisch actieve eiwitten, waarbij het ontrafelen van deze mechanismen essentieel is voor het begrijpen van hun antivirale activiteit (Figuur 1).
Protocol
1. Voorbereiding van materialen
- Bereid het expressiesysteem voor
- Gebruik chemisch competente Escherichia coli BL21 Rosetta2-cellen als expressiehost.
- Gebruik een pET28a(+)-expressievector die SARS-CoV-2 Mpro codeert met 6× histidinetags aan de N- en C-termini.
- Bereid het groeimedium voor
- Bereid 5 L Luria–Bertani (LB)-medium door 10 g/L tryptone, 5 g/L gistextract en 10 g/L natriumchloride (NaCl) op te lossen in gedestilleerd water. Steriliseer het medium door autoclaveren bij 121 °C gedurende 20 min.
- Bereid de IPTG-stamoplossing
- Los 4,20 g IPTG op in 45 mL gedestilleerd water om een 0,4 M stamoplossing te bereiden. Bewaar de stamoplossing bij −20 °C.
- Bereid de buffers
- Bereid 1 L Mpro lysisbuffer (MLB) bestaande uit 50 mM Tris, 300 mM NaCl, 5% glycerol en 0,5% Triton X-100 (pH 7,5).
- Bereid 4 L Mpro eiwitbuffer (MB) bestaande uit 20 mM Tris en 150 mM NaCl (pH 7,5).
- Bereid 500 mL wasbuffer (WB) bestaande uit 20 mM Tris, 150 mM NaCl en 20 mM imidazole (pH 7,5).
- Bereid telkens 100 mL van Elutiebuffer 1 (100 mM imidazole), Elutiebuffer 2 (250 mM imidazole) en Elutiebuffer 3 (500 mM imidazole), elk bestaande uit 20 mM Tris en 150 mM NaCl (pH 7,5).
- Bereid 1 mL 4× monsterbuffer bestaande uit mercaptoethanol, bromofenolblauw, glycerol, Tris (pH 6,8), natriumdodecylsulfaat (SDS) en gedestilleerd water.
- Bereid 1 L fosfaatgebufferde zoutoplossing (PBS) bestaande uit KCl, KH₂PO₄, Na₂HPO₄ en NaCl in gedestilleerd water.
2. Mpro-expressie in Escherichia coli
- Transformeer het expressieplasmide in E. coli
- Bereid chemisch competente E. coli Rosetta2-cellen voor met behulp van een commerciële transformatiekit. Inoculeer 5 mL super optimaal bouillon (SOB)-medium en incubeer de cultuur overnacht bij 37 °C onder schudding.
- Overbreng de overnachtcultuur naar 100 mL SOB-medium en kweek de cellen tot een OD600 van 0,4–0,5. Koel de cultuur op ijs en centrifugeer bij 1.800 × g gedurende 5 min.
- Was het celpellet tweemaal met wasbuffer en resuspendeer het in competente buffer. Verdeel de competente cellen in aliquoten van 50 µL en bewaar deze bij −70 °C.
- Transformeer het expressieplasmide in chemisch competente bacteriën
- Ontdooi één aliquot competente cellen gedurende 10 min op ijs. Voeg 1 µL plasmide-DNA (<50 ng) toe en meng voorzichtig.
- Incubeer de cellen 30 min op ijs. Plaats de getransformeerde cellen op LB-agar (1,5% agar) bevattend 100 µg/mL kanamycin en incubeer de platen overnacht (ca. 18 u) bij 37 °C.
- Breid de bacteriële cultuur uit
- Inoculeer 5 mL LB-medium bevattend 100 µg/mL kanamycin met een enkele kolonie. Incubeer de cultuur overnacht bij 37 °C onder schudding bij 200 rpm.
- Overbreng de overnachtcultuur naar 100 mL LB-medium bevattend 100 µg/mL kanamycin. Incubeer de cultuur overnacht onder dezelfde omstandigheden.
- Overbreng 35 mL van de overnachtcultuur naar 1 L LB-medium bevattend 100 µg/mL kanamycin. Incubeer de cultuur bij 37 °C onder schudding bij 140 rpm totdat de OD600 1,0–1,2 bereikt.
- Induceer Mpro-expressie
- Koel de cultuur af tot 16 °C. Voeg 1 mL 0,4 M IPTG (0,4 mM eindconcentratie) toe om de eiwitexpressie te induceren.
- Incubeer de cultuur bij 16 °C onder schudding bij 140 rpm gedurende 72 u.
3. Oogsten en zuiveren van Mpro
- Oogst de bacteriële cellen
- Centrifugeer de cultuur bij 5,000 × g en 4 °C gedurende 1 u. Verwijder het supernatant en resuspendeer de pellet in 35 mL fosfaatgebufferde zoutoplossing (PBS).
OPMERKING: Zorg voor een volledige resuspensie van de pellet om het eiwitherstel tijdens de verdere zuivering te maximaliseren. - Overbreng de suspensie naar een centrifugebuis van 50 mL en centrifugeer bij 6,800 × g en 4 °C gedurende 10 min. Verwijder het supernatant en bewaar de celpellet bij −20 °C.
- Centrifugeer de cultuur bij 5,000 × g en 4 °C gedurende 1 u. Verwijder het supernatant en resuspendeer de pellet in 35 mL fosfaatgebufferde zoutoplossing (PBS).
- Lyseer de cellen
- Ontdooi de celpellet op ijs gedurende 15–30 min. Resuspendeer de pellet in 80 mL Mpro lysebuffer (MLB) tot het mengsel homogeen is.
OPMERKING: Houd de buffer en het monster tijdens deze stap op ijs om proteïnedegradatie en aggregatie te minimaliseren. - Sonicate de suspensie op ijs gedurende 10 min met pulsen van 30 s bij 50–60% amplitude met koelintervallen van 2 min tussen de pulsen.
- Overbreng het lysaat naar centrifugebuizen en centrifugeer bij 60,000 × g en 4 °C gedurende 1 u. Verzamel het geklaarde supernatant voor affiniteitszuivering.
- Ontdooi de celpellet op ijs gedurende 15–30 min. Resuspendeer de pellet in 80 mL Mpro lysebuffer (MLB) tot het mengsel homogeen is.
- Zuiver Mpro middels geïmmobiliseerde metaalaffiniteitschromatografie
- Equilibreer de affiniteitskolom met 10 kolomvolumes (CV) gedestilleerd water, gevolgd door 10 CV Mpro eiwitbuffer (MB). Bereid de was- en elutiebuffers voor voordat het monster wordt geladen.
OPMERKING: Voorkom dat er luchtbellen in de kolom terechtkomen, omdat deze de bindingsefficiëntie kunnen verminderen. - Laad het geklaarde lysaat op de geéquilibreerde kolom bij een lage stroomsnelheid. Verzamel de flow-through.
OPMERKING: Handhaaf een voldoende lage stroomsnelheid om de binding van het His-getagde eiwit te maximaliseren. - Was de kolom met 50 mL wasbuffer (WB). Verzamel de laatste 2 mL van de wasfractie voor kwaliteitsbeoordeling indien nodig.
- Elueer het gebonden eiwit sequentieel met 6 mL Elutiebuffer 1 (drie fracties van 2 mL), 6 mL Elutiebuffer 2 (drie fracties van 2 mL) en 8 mL Elutiebuffer 3 (vier fracties van 2 mL). Houd alle verzamelde fracties op ijs.
- Equilibreer de affiniteitskolom met 10 kolomvolumes (CV) gedestilleerd water, gevolgd door 10 CV Mpro eiwitbuffer (MB). Bereid de was- en elutiebuffers voor voordat het monster wordt geladen.
- Regenereer de affiniteitskolom
- Was de kolom sequentieel met 10 CV Elutiebuffer 3, 10 CV Mpro eiwitbuffer, 10 CV gedestilleerd water en 10 CV 20% ethanol.
- Beoordeel de eiwitkwaliteit
- Meng 45 µL van elk eiwitmonster met 15 µL 4× monsterbuffer. Verhit de monsters bij 100 °C gedurende 10 min en centrifugeer ze kort.
- Scheid de monsters op een 10–12% SDS-PAGE gel bij 150 V totdat het kleurfront de onderkant van de gel bereikt.
- Kleur de gel met Coomassie-kleuring gedurende 15–30 min. Spoel de gel met gedestilleerd water en beoordeel de eiwitzuiverheid (verwacht molecuulgewicht: ca. 36 kDa).
4. Proteïnevoorbereiding
- Vervang de buffer en concentreer het eiwit
- Vervang de eiwitbuffer door Mpro eiwitbuffer (MB) met behulp van centrifugale filters (MWCO: 10 kDa). Concentreer de eiwitoplossing tot een eindvolume van ongeveer 1 mL.
- Kwantificeer het eiwit
- Meet de eiwitconcentratie met een spectrophotometer. Nul het instrument met MB vóór de meting.
- Bereken de eiwitconcentratie met behulp van de juiste extinctiecoëfficiënt (ε = 0.931).
5. Optimaliseer de assaycondities
- Bereid de assay-reagentia voor
- Bereid een 3 µM stockoplossing van gezuiverd Mpro en een 300 µM stockoplossing van het peptide-substraat voor in Mpro eiwitbuffer (MB).
- Bereid seriële verdunningen
- Bereid zes tweevoudige seriële verdunningen van de Mpro stockoplossing in MB.
- Bereid drie tweevoudige seriële verdunningen van het peptide-substraat in MB.
- Configureer de plaatlezer
- Verwarm de plaatlezer voor tot 37 °C. Stel de excitatiegolflengte in op 320 nm, de emissiegolflengte op 420 nm (20 nm bandbreedte) en het acquisitie-interval op 60 s voor een totale meettijd van 60 min.
OPMERKING: Bereid alle assay-componenten voor voordat het substraat wordt toegevoegd, aangezien de reactie onmiddellijk start na toevoeging van het substraat.
- Verwarm de plaatlezer voor tot 37 °C. Stel de excitatiegolflengte in op 320 nm, de emissiegolflengte op 420 nm (20 nm bandbreedte) en het acquisitie-interval op 60 s voor een totale meettijd van 60 min.
- Bereid de assay-plaat voor
- Voeg 25 µL van elke Mpro verdunning toe aan kolommen 1–6 van een zwarte 96-well plaat. Voeg 25 µL MB toe aan kolom 7 als controle zonder enzym.
- Voeg 100 µL MB toe aan elke well.
OPMERKING: Gebruik zwarte 96-well platen om achtergrondfluorescentie te minimaliseren en het fluorescentiesignaal te optimaliseren.
- Start de reactie
- Voeg 25 µL van het peptide-substraat toe aan rijen A–C. Voeg 25 µL MB toe aan rij D om als controle zonder substraat te dienen.
- Start de fluorescentie-acquisitie onmiddellijk na toevoeging van het substraat.
- Analyseer de gegevens
- Exporteer de fluorescentiegegevens en zet de relatieve fluorescentie-eenheden (RFU) uit tegen de tijd.
- Selecteer de Mpro en substraatconcentraties die een hoge signaal-ruisverhouding geven zonder dat er vroegtijdige signaalverzadiging optreedt (bijv. 500 nM Mpro en 50 µM substraat).
- Bepaal kinetische parameters (optioneel)
- Bepaal de kinetische parameters van het fluorogene substraat door de initiële reactiesnelheden te fitten aan de Michaelis-Menten-vergelijking. Zet fluorescentie-eenheden om in productconcentratie met behulp van een kalibratiecurve gegenereerd met 2-amino-N-(3-aminopropyl) benzamide. De gedetailleerde synthese van de kalibratiefluorofoor is opgenomen in Supplementary File 1.
6. Voer de FRET-assay uit
- De plaatlezer voorbereiden
- Verwarm de plaatlezer voor tot 37 °C. Stel de excitatiegolflengte in op 320 nm, de emissiegolflengte op 420 nm (bandbreedte van 20 nm) en het acquisitie-interval op 60 s voor een totale meettijd van 60 min.
- De assay-reagentia voorbereiden
- Bereid stamoplossingen van gezuiverd Mpro (3 µM), peptide-substraat (300 µM) en de testverbindingen in Mpro proteïnebuffer (MB).
- Maak seriële verdunningen van elke testverbinding in DMSO, waarbij een constante uiteindelijke DMSO-concentratie in alle monsters wordt gehandhaafd. Neem controles mee met alleen DMSO en alleen buffer.
- De reactiemengsels voorbereiden
- Verdun elke testverbinding of controle in 100 µL MB. Voeg 25 µL Mpro toe om een uiteindelijke enzymconcentratie van 500 nM te bereiken.
- Overbreng de reactiemengsels onmiddellijk naar de wells van een zwarte 96-wells plaat.
- De reactie starten
- Voeg 25 µL peptide-substraat toe aan elke well om een uiteindelijke substraatconcentratie van 50 µM te bereiken (uiteindelijk reactievolume: 150 µL).
- Start de fluorescentie-acquisitie onmiddellijk na toevoeging van het substraat.
OPMERKING: Begin direct na toevoeging van het substraat met de data-acquisitie om een nauwkeurige meting van de initiële reactiekinetiek te garanderen.
- De fluorescentiegegevens verzamelen
- Registreer de fluorescentie continu gedurende 60 min met de vooraf ingestelde acquisitie-instellingen.
Resultaten
Voor een succesvolle uitvoering van de assay voor tijdopgeloste fluorescentie-resonantie-energietransfer (TR-FRET) is optimalisatie van de enzym-substraatverhouding noodzakelijk. Zoals beschreven in het protocol kan dit worden bereikt door beide componenten te titreren. In deze studie werden enzymconcentraties variërend van 15,6 tot 50 nM getest in combinatie met substraatconcentraties variërend van 12,5 tot 50 µM. Controle-reacties zonder substraat of enzym werden mee opgenomen. In een apart experiment werd de Michaelis-Menten-constante (KM) bepaald op 29,2 ± 6,1 µM (Aanvullende Figuur 1).
De resultaten laten zien dat de enzymconcentratie primair de substraatomzetting bepaalt, terwijl de substraatconcentratie voornamelijk de intensiteit van het fluorescentiesignaal beïnvloedt. Hogere substraatconcentraties resulteerden in hogere initiële fluorescentiesignalen (t = 0). Zo varieerde de basislijnfluorescentie van ongeveer 40 tot 50 RFU in Figuur 2A, terwijl lagere substraatconcentraties lagere basislijnfluorescentiewaarden gaven (Figuur 2B,C). In afwezigheid van substraat (Figuur 2D) werd alleen achtergrondfluorescentie gedetecteerd, die typisch onder de 20 RFU lag.
Hogere enzymconcentraties resulteerden in een grotere substraatomzetting en verbeterde signaal-ruisverhoudingen (Figuur 2A). Bij de hoogste enzymconcentratie naderde de reactie na ongeveer 50 min een plateau, wat duidt op een bijna volledige substraatomzetting. Het plateau werd eerder bereikt bij lagere substraatconcentraties en later bij hogere substraatconcentraties. In contrast hiermee bereikten lagere enzymconcentraties geen verzadiging binnen de meetperiode van 60 min en vertoonden zij een ongeveer lineaire toename in fluorescentie.
Op basis van deze waarnemingen moeten de optimale assaycondities voldoen aan de volgende criteria: (1) minimale achtergrondfluorescentie in de controle zonder substraat; (2) een stabiele basislijnfluorescentie zonder substraatomzetting in de controle zonder enzym; (3) een enzym-substraatverhouding die een adequate signaal-ruisverhouding biedt voor kwantitatieve analyse; en (4) fluorescentiesignalen die aan het einde van de meetperiode een plateau naderen. Op basis van deze criteria werden een enzymconcentratie van 50 nM en een substraatconcentratie van 50 µM geselecteerd voor opvolgende experimenten.
Om het fluorogene substraat verder te karakteriseren, werden de enzymkinetische parameters bepaald onder standaardassaycondities met gebruik van acht substraatconcentraties (0,39–50 µM) en een vaste enzymconcentratie (15,9 nM). De initiële reactiesnelheden, verkregen uit de fluorescentie-progressiecurves, werden gefit volgens de Michaelis-Menten-vergelijking (Supplementary Figure 1A,B). Het substraat MI-282 vertoonde een KM van 29,2 ± 6,1 µM en een Vmax van 91,8 ± 14,2 RFU/s (n = 7). Met behulp van een kalibratiecurve gegenereerd met 2-amino-N-(3-aminopropyl) benzamide (Supplementary Figure 1C), werd de kcat berekend op 0,62 s⁻1, wat overeenkomt met een katalytische efficiëntie (kcat/KM) van 2,12 × 10⁴ s⁻1 M⁻1, ongeveer 30 keer hoger dan wat werd gerapporteerd voor eerder beschreven ACC-gebaseerde fluorogene substraten. Deze kinetische gegevens duiden op een efficiënte substraatherkenning door SARS-CoV-2 Mpro en bevestigen de geschiktheid van MI-282 voor gevoelige fluorescentiegebaseerde enzymatische assays.
De assay werd uitgevoerd met 50 nM Mpro en 50 µM substraat (Figuur 3 en Figuur 4). Nirmatrelvir werd gebruikt als referentie-inhibitor gericht op de katalytische site (de "inhibitor"). Parallel daaraan werden een Mpro-gerichte PROTAC die buiten de katalytische spleet bindt (de "PROTAC") en een overeenkomstig ligand zonder het E3-ligase-bindende deel (het "ligand") geëvalueerd. Alle verbindingen werden bij drie concentraties getest om dosisafhankelijke effecten te beoordelen.
Om te controleren voor oplosmiddeleffecten, bevatten alle reacties een constante DMSO-concentratie (0,1%). Aanvullende controles omvatten een controle met alleen buffer en een controle zonder enzym (mock-controle).
Er wordt verwacht dat de inhibitor de substraatomzetting op een dosisafhankelijke manier vermindert. In tegenstelling hiertoe wordt verwacht dat de PROTAC, die zich buiten de katalytische site bindt, de enzymatische activiteit onder celvrije omstandigheden niet significant beïnvloedt. Op dezelfde wijze wordt verwacht dat de ligandcontrole weinig tot geen effect heeft op de substraatomzetting. De mock-controle moet gedurende het gehele experiment de basisfluorescentie behouden.
Conform de verwachtingen had DMSO geen meetbaar effect op de enzymactiviteit in vergelijking met de buffercontrole (Figuur 3A–C, zwart). Evenzo behield de mock-controle een stabiel basislijn-fluorescentiesignaal gedurende het gehele experiment (Figuur 3A–C, magenta).
De remmer veroorzaakte een dosisafhankelijke remming van de Mpro-activiteit (Figuur 3A, rood). Bij 10 µM was de substraatomzetting aanzienlijk verminderd, terwijl lagere concentraties progressief zwakkere remming veroorzaakten. In tegenstelling hiertoe veroorzaakten zowel de PROTAC (Figuur 3B, blauw) als het ligand (Figuur 3C, groen) slechts geringe reducties in de substraatomzetting. Omdat beide verbindingen dezelfde warhead delen, is hun vergelijkbare gedrag consistent met hun bindingseigenschappen. Belangrijk is dat geen van beide verbindingen de enzymatische activiteit significant remde onder de geteste omstandigheden.
Deze bevindingen zijn belangrijk voor de interpretatie van antivirale activiteit op basis van degradatie. Omdat de PROTAC een minimale remming van de Mpro-enzymatische activiteit vertoonde, in tegenstelling tot de actieve-site-remmer, is elke waargenomen vermindering van de virale replicatie in celgebaseerde assays primair toe te schrijven aan proteïnedegradatie in plaats van aan directe enzymatische remming. Dit mechanistische onderscheid is essentieel om te valideren dat de antivirale activiteit wordt gemedieerd via het beoogde degradatiemechanisme.
De reactiekinetiek werd verder geëvalueerd door de oppervlakte onder de fluorescentie-tijdscurve te berekenen (AUC; Figuur 4), wat een kwantitatieve maat geeft voor de cumulatieve substraatomzetting (ΣRFU). De AUC werd berekend als de som van de RFU-waarden over alle vastgelegde tijdspunten.
Deze analyse bevestigde dat alleen de hoogste inhibitorconcentratie de substraatomzetting significant verminderde. De PROTAC veroorzaakte slechts een gering dosisafhankelijk effect, terwijl het ligand geen meetbaar effect had. De DMSO- en buffercontroles gaven vergelijkbare resultaten. De mock-controle vertoonde een lichte afname in fluorescentie gedurende de tijd, hoogstwaarschijnlijk als gevolg van fotobleken van de fluorofoor.
Representatieve voorbeelden van mislukte of suboptimale reacties worden getoond in Figuur 5 om mogelijke beperkingen van de assay te illustreren. Betrouwbare assayprestaties zijn afhankelijk van zowel de zuiverheid als de integriteit van de enzympreparatie, welke geverifieerd moeten worden voordat de resultaten worden geïnterpreteerd.
Figuur 5A illustreert een mislukte reactie waarbij ofwel de enzymzuiverheid onvoldoende was of de concentratie van het actieve enzym te laag was om substraatomzetting te ondersteunen. De initiële fluorescentiebasislijn (t = 0) overschreed 1.0 RFU, mogelijk als gevolg van een onjuiste substraatbereiding of onzuiverheden in de enzymbereiding die bijdragen aan de achtergrondfluorescentie. Bovendien werd er onder geen enkele experimentele conditie substraatomzetting waargenomen, wat wijst op een onvoldoende hoeveelheid actief enzym of contaminatie die de enzymatische activiteit beïnvloedde.
Een controle zonder substraat kan worden toegevoegd om te bepalen of de enzympreparatie bijdraagt aan de achtergrondfluorescentie. Idealiter moet dit signaal minimaal blijven. In de geoptimaliseerde assay (Figuur 5B) bleef de achtergrondfluorescentie onder de 20 RFU en was deze consistent over alle enzymconcentraties, wat aangeeft dat de enzympreparatie verwaarloosbaar bijdroeg aan het achtergrondsignaal. Hoewel interferentie met de enzymatische activiteit niet volledig kan worden uitgesloten, kan een substantiële bijdrage van de enzympreparatie aan de verhoogde basislijnfluorescentie worden uitgesloten.
De bereiding van het substraat is een andere kritieke bepalende factor voor de prestaties van de assay. In deze studie werd het peptide-substraat opgelost in eiwitbuffer om consistente assay-condities te handhaven. Tijdens de optimalisatie van de assay werd de oplosbaarheid van het substraat geëvalueerd in twee eiwitbuffers en in gedestilleerd water. Het oplossen van het substraat in gedestilleerd water verminderde de oplosbaarheid en bevorderde peptide-aggregatie. Omdat deze aggregaten geleidelijk oplosten tijdens de assay, veroorzaakten ze abrupte stijgingen in fluorescentie, wat leidde tot onnauwkeurige schattingen van de effectieve substraatconcentraties (Figuur 5C, rood). Gebruik daarom een oplosmiddel dat de volledige oplosbaarheid van het substraat handhaaft terwijl de enzymactiviteit behouden blijft.
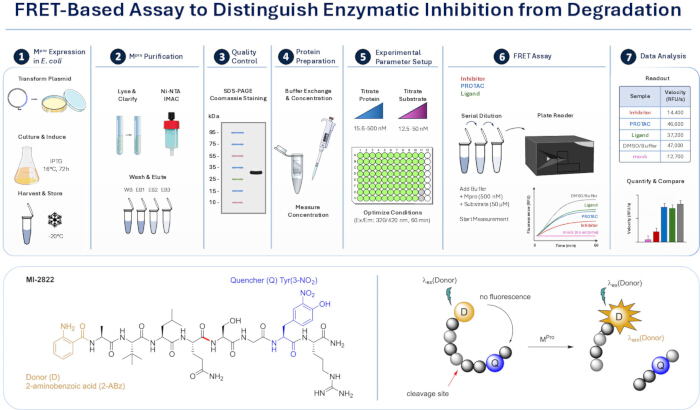
Figuur 1Overzicht van het FRET-gebaseerde experiment en het assay-principe. Het bovenste paneel illustreert de experimentele workflow, inclusief recombinant MPro expressie in E. coli, zuivering via geïmmobiliseerde metaalaffiniteitschromatografie, kwaliteitscontrole, eiwitpreparatie en optimalisatie van de assaycondities, gevolgd door de FRET-assay en data-analyse. Het onderste paneel beeldt het assayprincipe uit: een gequencht fluorogeen peptidesubstraat wordt gesplitst door Mprowaardoor de fluorofoor en quencher van elkaar gescheiden worden en er een overeenkomstige toename van het fluorescentiesignaal optreedt. Deze opstelling maakt kinetische monitoring van enzymatische activiteit mogelijk en vergelijking van condities behandeld met inhibitoren, PROTACs en liganden. Afkortingen: Mpro = hoofdprotease, *E. coli* = Escherichia coli, FRET = fluorescentie-resonantie-energietransfer, PROTAC = proteolyse-targeterende chimera. Klik hier om een grotere versie van deze figuur te bekijken.
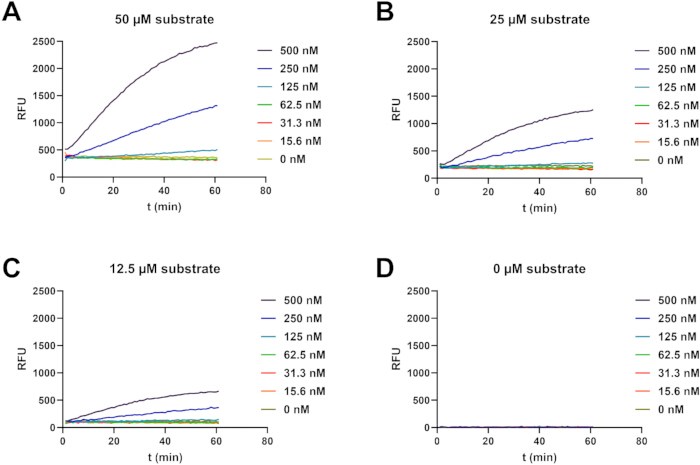
Figuur 2Proteïne- en substraattitratie. In een totaal reactievolume van 150 µL, een seriële verdunning van gezuiverde Mpro (15,6–500 nM) werd gecombineerd met (A) 50 µM, (B) 25 µM, (C) 12.5 µM substraat, of (D) buffer (controle zonder substraat). Reacties werden uitgevoerd in zwarte 96-wells platen met een platte bodem en gemonitord met een multimode microplatereader. Fluorescentie werd elke 60 s gedurende 60 min geregistreerd (λHeeft u een tekst die vertaald moet worden? Voeg de brontekst toe, zodat ik deze volgens uw specifieke richtlijnen voor JoVE-inhoud naar het Nederlands kan vertalen. 320 nm, λem 420 nm). RFU wordt uitgezet tegen de tijd. Afkortingen: MKlaar voor gebruik = hoofdprotease, λU heeft geen brontekst opgegeven om te vertalen. Voer aub de Engelse tekst in die u naar het Nederlands vertaald wilt hebben. = excitatiegolflengte, λem = emissiegolflengte, RFU = relatieve fluorescentie-eenheden. Klik hier om een grotere versie van deze figuur te bekijken.
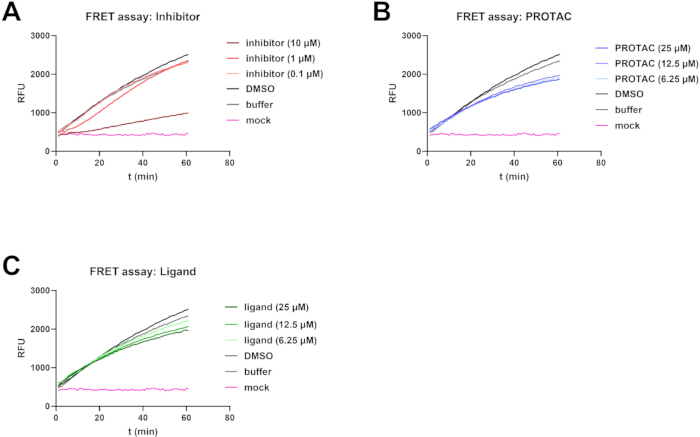
Figuur 3TR-FRET in de aanwezigheid van Mpro inhibitor, PROTAC en ligand. In een totaal reactievolume van 150 µL, 500 nM gezuiverde Mpro werd geïncubeerd met 50 µM substraat in de aanwezigheid van seriële verdunningen van (A) de actieve site-remmer nirmatrelvir, (B) een Mpro-targeterende PROTAC, of (C) het corresponderende ligand zonder het E3-ligase-bindende deel. Reacties werden uitgevoerd in zwarte 96-wells platen met een vlakke bodem en gemonitord in een multimode microplate-reader. De fluorescentie werd elke 60 s gedurende 60 min geregistreerd (λU heeft geen brontekst verstrekt om te vertalen. Gelieve de Engelse tekst in te voeren die u naar het Nederlands vertaald wilt hebben. 320 nm, λem 420 nm). RFU-waarden worden uitgezet tegen de tijd. Afkortingen: Mpro = hoofdprotease, PROTAC = proteolysis-targeting chimera, λOm een accuraat resultaat te bereiken, dient u de brontekst in te voeren die vertaald moet worden. Zodra u de Engelse wetenschappelijke tekst aanlevert, zal ik deze vertalen naar academisch Nederlands, met strikte inachtneming van de wetenschappelijke terminologie en de door u opgegeven richtlijnen. = excitatiegolflengte, λem = emissiegolflengte. RFU = relatieve fluorescentie-eenheden. Klik hier om een grotere versie van deze figuur te bekijken.
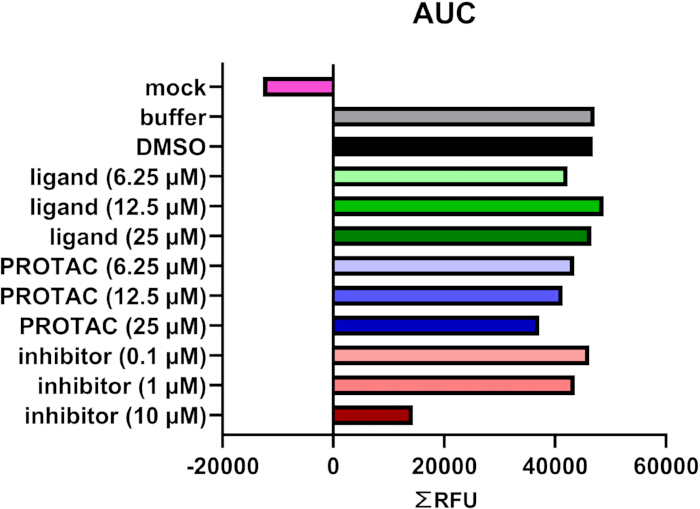
Figuur 4Geïntegreerde kinetische analyse van de TR-FRET-assay. Geïntegreerde kinetiek afgeleid van de AUC (getoond in Figuur 3) worden uitgedrukt als ΣRFU, wat alle RFU's over 60 min integreert. AUC-waarden kwantificeren de substraatomzetting en maken een directe vergelijking mogelijk van condities behandeld met inhibitoren, PROTAC's en liganden. Afkortingen: AUC = oppervlakte onder de curve, RFU = relatieve fluorescentie-eenheden, PROTAC = proteolysis-targeting chimera. Klik hier om een grotere versie van deze figuur te bekijken.
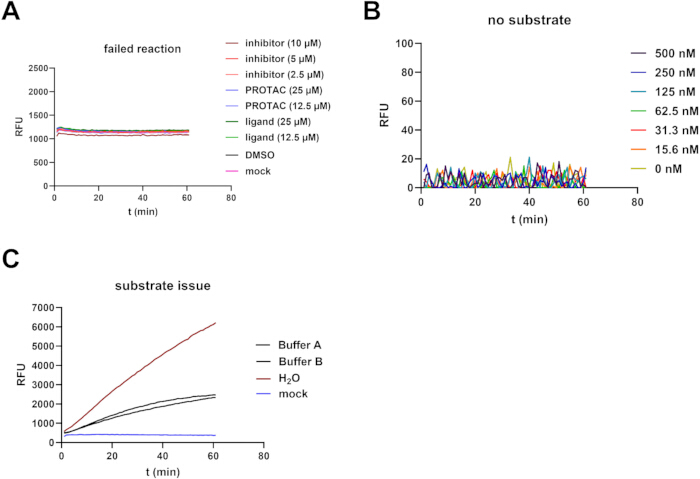
Figuur 5Voorbeeldresultaten van mislukte reacties en controle-experimenten. (A) TR-FRET-assay uitgevoerd zoals beschreven in Figuur 3, inclusief seriële verdunningen van remmer, PROTAC en ligand. De gegevens tonen een mislukte reactie aan, gekenmerkt door een verhoogde basislijnfluorescentie en de afwezigheid van substraatomzetting onder alle condities. (B) Controle zonder substraat, uitgevoerd zoals beschreven in Figuur 2DDe achtergrondfluorescentie blijft laag (<20 RFU) en constant over verschillende enzymconcentraties. (C) TR-FRET-assay uitgevoerd zoals beschreven in Figuur 3 gebruik van substraat opgelost in verschillende oplosmiddelen (eiwitbuffers A en B of dH₂O). Slechte oplosbaarheid in dH₂O resulteert in peptideaggregatie, wat leidt tot onregelmatige stijgingen van de fluorescentie als gevolg van vertraagde substraatoplossing en onnauwkeurige effectieve concentraties. Afkortingen: TR-FRET = time-resolved fluorescence resonance energy transfer, PROTAC = proteolysis-targeting chimera. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende figuur 1: Enzymkinetische analyse van het hoofdprotease van SARS-CoV-2 (15,9 nM in assay) met gebruik van substraat MI-282. (A) Voortgangscurves bij substraatconcentraties van 50 µM (zwart), 25 µM (lichtgroen), 12,5 µM (blauw), 6,25 µM (roze), 3,13 µM (donkergroen), 1,56 µM (donkerblauw), 0,78 µM (violet) en 0,39 µM (paars). (B) Fitting van de snelheden aan de Michaelis-Menten-vergelijking leverde een KM op van 29,2 ± 6,1 µM en een Vmax-waarde van 91,8 ± 14,2 RFU/s (n = 7). (C) Een kalibratiecurve met fluorofoor 2-amino-N-(3-aminopropyl) benzamide werd gebruikt voor het berekenen van een kcat van 0,62 s-1 en een kcat/KM-waarde van 2,12 × 10⁴ s-1 M-1.Klik hier om dit bestand te downloaden.
Aanvullend bestand 1: Synthese van 2-amino-N-(3-aminopropyl)benzamide. Gedetailleerde synthetische procedure en analytische karakterisering van 2-amino-N-(3-aminopropyl)benzamide, het wateroplosbare amide-derivaat van de fluorofoor 2-aminobenzamide (2-Abz) gebruikt voor fluorescentiekalibratie in de enzymkinetische assay.Klik hier om dit bestand te downloaden.
Discussie
In dit werk presenteren wij een assay gebaseerd op tijdopgeloste fluorescentieresonantie-energietransfer (TR-FRET) om de enzymatische activiteit van SARS-CoV-2 Mpro te beoordelen in de aanwezigheid van inhibitoren, proteolyse-targeterende chimeren (PROTACs) en hun overeenkomstige liganden. De assay is ontwikkeld om functioneel onderscheid te maken tussen effecten van een PROTAC die uitsluitend voortkomen uit proteïnedegradatie en effecten die het resultaat zijn van directe inhibitie van de katalytische activiteit van het doelenzym. Met behulp van een fluorogeen peptide-substraat tonen we aan dat een Mpro-targeterende PROTAC die buiten de katalytische spleet bindt, slechts een gering effect heeft op de enzymatische activiteit, terwijl de actieve-site-inhibitor nirmatrelvir de substraatomzetting aanzienlijk onderdrukt.
Betrouwbare assayprestaties zijn afhankelijk van verschillende kritische factoren, waaronder de zuiverheid en activiteit van het recombinante enzym, volledige oplosbaarheid en nauwkeurige bereiding van het peptide-substraat, en zorgvuldige optimalisatie van de enzym- en substraatconcentraties. Suboptimale enzymkwaliteit of onnauwkeurige substraatconcentraties kunnen de achtergrondfluorescentie verhogen of de detecteerbare substraatomzetting verminderen. Bovendien moeten metingen van de enzymactiviteit onmiddellijk na toevoeging van het substraat beginnen, en moet de platenlezer temperatuurgeëquilibreerd zijn voordat de assay wordt gestart om consistente en reproduceerbare kinetische metingen te waarborgen.
De assay kan eenvoudig worden aangepast aan verschillende proteasen15,16,17,18,19 of experimentele configuraties door de enzym- en substraatconcentraties te optimaliseren om het gewenste dynamische bereik te bereiken. Passende controles, waaronder controles zonder enzym, zonder substraat en solventcontroles, zijn essentieel voor het identificeren van assay-gerelateerde artefacten. Bij het oplossen van problemen moet de focus liggen op het onderscheiden van technische artefacten van werkelijke effecten op de enzymatische activiteit door de achtergrondfluorescentie te evalueren, de integriteit en activiteit van het enzym te bevestigen en, indien nodig, alternatieve substraatsolventen te testen. In het bijzonder kan onvolledige oplosbaarheid van het substraat leiden tot aggregatie en onregelmatige toenames in fluorescentie als gevolg van vertraagde oplossing van het substraat tijdens de reactie.
Omdat deze assay wordt uitgevoerd in een biochemisch, celvrij systeem, worden degradatie-afhankelijke processen zoals de vorming van ternaire complexen, ubiquitinitering of proteasomale degradatie niet vastgelegd. Bijgevolg meet deze assay specifiek de bijdrage van directe enzymatische inhibitie zonder de degradatie-efficiëntie te beoordelen. Daarnaast kunnen verbinding-gerelateerde artefacten, waaronder intrinsieke fluorescentie, fluorescentie-quenching of interferentie met substraatsplitsing, de uitlezing van de assay beïnvloeden. Deze potentiële storende factoren moeten worden aangepakt door passende controle-experimenten op te nemen, waaronder controles met enkel de verbinding, zonder enzym, zonder substraat en solventcontroles. Een nauwkeurige interpretatie van de resultaten vereist bovendien dat de assay-condities binnen het lineaire bereik van de enzymkinetiek blijven.
In vergelijking met celgebaseerde degradatie-assays biedt de gepresenteerde TR-FRET-assay een directe en kwantitatieve meting van de enzymatische activiteit onder goed gedefinieerde biochemische omstandigheden. Cellulaire assays die de antivirale activiteit van PROTACs evalueren, integreren meerdere biologische processen, waaronder targetdegradatie en downstream-gevolgen zoals een belemmerde verwerking van virale polyproteïnen, verminderde virale replicatie en een gewijzigde expressie van virale eiwitten. Hoewel deze assays waardevolle informatie verschaffen over de algehele antivirale effectiviteit, kunnen ze over het algemeen niet onderscheiden of de waargenomen effecten het resultaat zijn van directe remming van de enzymatische activiteit of van degradatie van het targeteiwit10,12,13,14. De TR-FRET-assay maakt daarentegen een precieze mechanistische dissectie op enzymatisch niveau mogelijk en dient daarom als een belangrijke aanvulling op gevestigde biochemische en cellulaire benaderingen.
Deze assay is bijzonder waardevol voor de ontwikkeling en optimalisatie van PROTAC's en andere bifunctionele moleculen die gericht zijn op enzymatisch actieve eiwitten. Veel antivirale degraders bevatten warheads afgeleid van actieve-site-remmers, waardoor directe enzymatische inhibitie wordt gecombineerd met gerichte eiwitdegradatie10,12,13,14. Niet alle ligandscaffolds bezitten echter intrinsieke inhiberende activiteit, en structurele modificaties, zoals de aanhechting van een linker, kunnen de bindingsaffiniteit of de bindingsmodus veranderen20. De gepresenteerde assay maakt daarom een kwantitatieve beoordeling mogelijk van de bijdrage van directe enzymatische inhibitie aan de totale antivirale activiteit van een PROTAC. Naast SARS-CoV-2 Mpro is de methode breed toepasbaar op andere virale proteasen en enzymatische targets en kan deze de rationele ontwikkeling van degraders met goed gedefinieerde mechanistische profielen faciliteren. Belangrijk is dat deze TR-FRET assay, door aan te tonen dat de onderzochte PROTAC slechts minimale directe inhibitie van de Mpro-activiteit in vitro induceert, mechanistische validatie biedt dat de antivirale effecten waargenomen in daaropvolgende celgebaseerde assays primair toe te schrijven zijn aan eiwitdegradatie in plaats van directe enzymatische inhibitie.
Samenvattend biedt de gepresenteerde TR-FRET-assay een robuust, gevoelig en veelzijdig platform om direct enzymatische inhibitie te onderscheiden van effecten die gerelateerd zijn aan degradatie. Wanneer deze methode wordt geïntegreerd met aanvullende cellulaire assays, maakt dit een volledige karakterisering van de werkingsmechanismen van PROTACs mogelijk en ondersteunt het de rationele ontwikkeling van antivirale degraders van de volgende generatie.
Openbaarmakingen
De auteurs hebben geen belangenconflicten te verklaren.
Dankbetuigingen
Wij danken Laura Bunt, Justus Happe, Dominique Hagene en Lukas Plamper voor hun ondersteuning bij de synthese van de in deze studie gebruikte verbindingen. Wij danken verder Konstantin Bloch en Miriam Ruth Heindl voor hun advies tijdens de totstandkoming van deze assay. Bovendien danken wij de Jürgen Manchot Foundation, het LOEWE Center DRUID en de Uniscientia Foundation voor de financiering.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Acrylamide (Rotiphorese® Gel 30) | Carl Roth | 3029.1 | SDS-PAGE-ingrediënt |
| Ammoniumpersulfaat (APS) | Biorad | 1610700 | SDS-PAGE-ingrediënt |
| Bacteriestam BL21 Rosetta2 | La Jolla Institute for Immunology, San Diego, USA | N/A | verstrekt door partners |
| BioTek Synergy H1 Multimode Reader | Agilent Technologies | Synergy H1 | Voor TR-FRET-uitlezing |
| Zwarte 96-well FluoroNunc MaxiSorp platen | Thermo-Fisher Scientific | 437111 | Zorg dat er zwarte platen worden gebruikt |
| Bromfenolblauw | Sigma-Aldrich | 1.08122 | Ingrediënt van monsterbuffer |
| Centrifuge 5430-R (tafelmodel) | Eppendorf | 5430-R | Met koelfunctie |
| Centrifuge Avanti J-25 | Beckman Coulter | 6594 | Hogesnelheidscentrifuge |
| Centrifuge Avanti J-26 XP | Beckman Coulter | JXN-26 | Hogesnelheidscentrifuge |
| Dimethylsulfoऑक्साइड (DMSO) | Carl Roth | A994.1 | Oplosmiddel |
| Dinatriumwaterstoffosfaat (Na2HPO4) | Carl Roth | X987.2 | Buffer-ingrediënt |
| Ethanol (ROTIPURAN® ≥ 99,8 %, p.a.) | Carl Roth | 9065.1 | Voor IMAC |
| Glycerol | Carl Roth | 6967.1 | Voor bacteriële stock |
| Hei-FLOW Core 120 peristaltische pomp | Heidolph | 523-50010-00 | Voor IMAC |
| Heraeus Multifuge 3S-R | Heraeus | 2395 | Zonder koelfunctie |
| HisTrap® FF Crude histidine-tagged eiwitzuiveringskolommen (5 mL) | Cytiva | 17528601 | Voor IMAC |
| Imidazole | Carl Roth | 3899.3 | Voor eiwit-elutie tijdens IMAC |
| InoLab pH/ION 7320 BNC pH-meter | WTW | 1GA330 | Voor pH-titratie |
| Isopropyl-β-D-thiogalactopyranoside (IPTG) | Carl Roth | CN08.1 | Voor expressie-inductie |
| Kanamycinesulfaat | Sigma-Aldrich | PHR1487 | Antibioticum |
| Magnetroerder (verwarmd) | Heidolph | 7402 | Voor bufferproductie |
| Mercaptoethanol | Sigma-Aldrich | M6250-10ML | Ingrediënt van monsterbuffer |
| MultiScreen® 96-well plaat | MilliporeSigma | MSSBNFX40 | Voor verdunningen |
| N,N,N',N'-tetramethyletheleendiamine (TEMED) | Fisher Scientific | 11424214 | SDS-PAGE-ingrediënt |
| Fotometer Nanodrop ND1000 | Peqlab | 7533 | Bepaling van eiwitconcentratie |
| Plasmidvector pET28a(+) | Addgene | 69864-3 | Expressievector |
| Kaliumchloride (KCl) | Carl Roth | 1LCY.1 | Buffercomponent |
| Kaliumwaterstoffosfaat (KH2PO4) | Carl Roth | 3904.1 | Buffercomponent |
| Protein Detective - ultrafast Coomassie eiwitkleuring (1 L) | BIOZOL | BZL-PD1 | Voor snelle en eenvoudige eiwitkleuring |
| Rotor JA 25.50 en JLA 8.1000 | Beckmann Coulter | 363055, 363688 | Hogesnelheidsrotoren |
| SenTix® 81 pH-elektrode | WTW | 103642 | Voor pH-titratie |
| Natriumchloride (NaCl) | Carl Roth | 3957.1 | Buffer- en mediumcomponent |
| Natriumdodecylsulfaat (SDS) | Carl Roth | 0183.1 | SDS-PAGE- en monsterbuffer-ingrediënt |
| Sonifier Branson Ultrasonics S-450 | BANDELIN electronic | 10656933 | Voor sonicatie |
| SP standaard (wt 1,6 mm) enkelkanaals pompkop | Heidolph | 523-43010-00 | Voor IMAC |
| Spark Multimode Microplate Reader | Tecan Group | N/A | Enzymkinetische assay |
| Tris | Carl Roth | 4855.2 | Buffer-ingrediënt |
| Triton-X100 | Sigma-Aldrich | X100-100ML | Buffer-ingrediënt |
| Trypton/Pepton | Carl Roth | 6681.3 | Medium-ingrediënt |
| Gistextract | Carl Roth | 2363.2 | Medium-ingrediënt |
| Z-Competent E. coli Transformation Kit® and Buffer Set | Zymo Research | T3001 | Voor bacteriële transformatie |
Referenties
- Samarasinghe KTG, Crews CM. Targeted protein degradation: A promise for undruggable proteins. Cell Chem Biol. 2021;28(7):934-951.
- Dong G, Ding Y, He S, Sheng C. Molecular glues for targeted protein degradation: From serendipity to rational discovery. J Med Chem. 2021;64(15):10606-10620.
- Buetow L, Huang DT. Structural insights into the catalysis and regulation of E3 ubiquitin ligases. Nat Rev Mol Cell Biol. 2016;17(10):626-642.
- Li W, et al. Genome-wide and functional annotation of human E3 ubiquitin ligases identifies MULAN, a mitochondrial E3 that regulates the organelle's dynamics and signaling. PLoS One. 2008;3(1).
- Békés M, Langley DR, Crews CM. PROTAC targeted protein degraders: The past is prologue. Nat Rev Drug Discov. 2022;21(3):181-200.
- Crowe C, et al. Mechanism of degrader-targeted protein ubiquitinability. Sci Adv. 2024;10(41).
- Fischer ES, et al. Structure of the DDB1-CRBN E3 ubiquitin ligase in complex with thalidomide. Nature. 2014;512(7512):49-53.
- Teng M, Gray NS. The rise of degrader drugs. Cell Chem Biol. 2023;30(8):864-878.
- Burke MR, Smith AR, Zheng G. Overcoming cancer drug resistance utilizing PROTAC technology. Front Cell Dev Biol. 2022;10.
- de Wispelaere M, et al. Small molecule degraders of the hepatitis C virus protease reduce susceptibility to resistance mutations. Nat Commun. 2019;10(1):3468.
- Paiva SL, Crews CM. Targeted protein degradation: Elements of PROTAC design. Curr Opin Chem Biol. 2019;50:111-119.
- Pan B, et al. Targeted protein degraders of SARS-CoV-2 Mpro are more active than enzymatic inhibition alone with activity against nirmatrelvir-resistant virus. Commun Med. 2025;5(1):140.
- Alugubelli YR, et al. Discovery of first-in-class PROTAC degraders of SARS-CoV-2 main protease. J Med Chem. 2024;67(8):6495-6507.
- Xu Z, et al. Discovery of oseltamivir-based novel PROTACs as degraders targeting neuraminidase to combat H1N1 influenza virus. Cell Insight. 2022;1(3):100030.
- Schwerdtner M, et al. Unveiling the role of TMPRSS2 in the proteolytic activation of pandemic and zoonotic influenza viruses and coronaviruses in human airway cells. Viruses. 2024;16(11):1798.
- Steinmetzer T, Hardes K. The antiviral potential of host protease inhibitors. In: Böttcher-Friebertshäuser E, Garten W, Klenk HD, editors. Activation of Viruses by Host Proteases. Springer; 2018. p. 279-325.
- Böttcher-Friebertshäuser E, et al. Cleavage of influenza virus hemagglutinin by airway proteases TMPRSS2 and HAT differs in subcellular localization and susceptibility to protease inhibitors. J Virol. 2010;84(11):5605-5614.
- Lam van TV, Ivanova T, Lindberg I, Böttcher-Friebertshäuser E, et al. Design, synthesis, and characterization of novel fluorogenic substrates of the proprotein convertases furin, PC1/3, PC2, PC5/6, and PC7. Anal Biochem. 2022;655:114836.
- Hardes K, Hammamy MZ, Steinmetzer T. Synthesis and characterization of novel fluorogenic substrates of coagulation factor XIII-A. Anal Biochem. 2013;442(2):223-230.
- Frost A, O'Connor S, Ciulli A. Allosteric PROTACs: Expanding the horizon of targeted protein degradation. J Am Chem Soc. 2026;148(3):2823-2837.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar