Dit protocol integreert de voorspelling van microbiële metabolietdoelen, transcriptomica van het rectale slijmvlies, eiwit-eiwitinteractie en padverrijking, moleculaire docking, moleculaire dynamicasimulatie en de schatting van de vrije bindingsenergie via Molecular mechanics/Poisson–Boltzmann surface area (MM-PBSA) om een gerangschikte, hypothesevormende shortlist van kandidaat-gastheergeneen geassocieerd met metabolieten en structureel geprioriteerde eiwit-ligandcomplexen te genereren voor experimentele follow-up.
Methodenartikel
Een computationele workflow voor het prioriteren van gastheergenen geassocieerd met microbiële metabolieten bij constipatie-predominant prikkelbare darmsyndroom
In dit artikel
Samenvatting
Samenvatting
Er bestaat geen gestandaardiseerde computationele pijplijn voor het systematisch prioriteren van gastheergeneven geassocieerd met microbiële metabolieten en eiwit-ligandcomplexen uit openbaar beschikbare chemische, genomische en structurele databases. Dit artikel beschrijft een workflow in acht fasen die een door de gebruiker gedefinieerde set van uit de darmmicrobiota afgeleide metabolieten accepteert en een gerangschikte shortlist produceert van kandidaat-gastheergeneven geassocieerd met metabolieten, verrijkte biologische pathways en structureel geprioriteerde eiwit-ligandcomplexen voor experimentele follow-up. De pijplijn integreert (i) chemo-informatische metabolietprofilering; (ii) voorspelling van kandidaat-targets via meerdere databases met behulp van een tool voor eiwit-chemische interactie en ligand-gebaseerde target-voorspelling en een moleculaire docking-programma; (iii) differentiële genexpressieanalyse van openbaar beschikbare transcriptomische gegevens; (iv) overlap tussen targets en differentieel tot expressie gebrachte genen; (v) constructie van een eiwit-eiwitinteractienetwerk en pathway-verrijking; (vi) moleculaire docking met een moleculaire docking-programma; (vii) een moleculaire dynamicasimulatie van 200 ns met een moleculaire dynamica-engine met een eiwitkrachtveld gebruikt voor moleculaire dynamicasimulaties; en (viii) MM-PBSA schatting van de vrije bindingsenergie. Als praktijkvoorbeeld werden negen uit de darmmicrobiota afgeleide of door de microbiota gemodificeerde metabolieten, vertegenwoordigers van kortketenige vetzuren, galzuren, uit tryptofaan afgeleide metabolieten en urolithine A, verwerkt met behulp van de openbare IBS-C rectale mucosale transcriptomische dataset GSE36701. De workflow rangschikte 17 unieke voorspelde metaboliet-geassocieerde genen die in deze dataset differentieel tot expressie werden gebracht. Docking, moleculaire dynamicasimulatie en MM-PBSA-analyses prioriteerden structureel vijf metaboliet-eiwitcomplexen: lithocholzuur-VDR, lithocholzuur-NR1H4/FXR, ursodeoxycholzuur-NR1H4/FXR, tryptamine-HTR2A (gesimuleerd in een expliciete 1-Palmitoyl-2-oleoyl-sn-glycero-3-phosphocholine (POPC) lipide dubbellaag) en urolithine A-CASP3. Het protocol is ontworpen om aanpasbaar te zijn aan andere metabolietsets, ziekte-transcriptomische datasets en targetklassen; alle resultaten zijn hypothese-genererende computationele voorspellingen die onafhankelijke transcriptomische replicatie, validatie op eiwitniveau en functionele ligand-respons assays vereisen voordat causale of therapeutische conclusies kunnen worden getrokken.
Inleiding
Prikkelbare darmsyndroom met constipatie (PDS-C) is een veelvoorkomende functionele gastro-intestinale stoornis die wordt gekenmerkt door terugkerende buikpijn, veranderde ontlastingsgewoonten, een opgeblazen gevoel en constipatie, met een wereldwijde prevalentie die wordt geschat op ongeveer 10–15% van de algemene bevolking1,2. Huidige farmacologische therapieën, waaronder secretagogen, prokinetica en antispasmodica, kunnen individuele symptomen verbeteren bij een subset van patiënten; echter blijft de respons op de behandeling heterogeen en wordt een duurzame remissie zelden bereikt, wat de complexe, multifactoriële pathobiologie van de aandoening weerspiegelt1,3,4. Een vollediger mechanistisch begrip van hoe microbiële signalen uit de darm op mucosaal niveau worden getransduceerd is daarom vereist om testbare hypothesen te genereren voor nieuwe therapeutische doelwitten.
Het darmmicrobioom draagt bij aan de homeostase van de lagere gastro-intestinale tractus via de productie en biotransformatie van chemisch diverse metabolieten, waaronder kortketenige vetzuren (SCFA's), secundaire galzuren, tryptofaan-afgeleide verbindingen en polyfenool-afgeleide metabolieten zoals urolithinen5,6,7,8. Deze moleculen communiceren met gastheercellen via een breed en onvolledig gekarakteriseerd repertoire van moleculaire targets dat zich ruim uitstrekt voorbij de canonieke metaboliet-detecterende membraanreceptoren en ook nucleaire receptoren, cytosolische enzymen, histon-modificerende eiwitten, peptidehormoonprecursoren en intracellulaire signaleringseiwitten omvat9. Veranderde samenstellingen van de darmmicrobiële gemeenschap en metabolietenprofielen zijn gedocumenteerd bij patiënten met het prikkelbare darmsyndroom (PDS), wat een biologische rationale biedt voor onderzoek naar de vraag of gastheergenen die geassocieerd zijn met de responsiviteit op microbiële metabolieten transcriptioneel verstoord zijn in het rectale slijmvlies bij PDS-C10.
Het panel van negen metabolieten werd a priori gedefinieerd om een compacte, chemisch diverse en biologisch interpreteerbare set van door darmmicrobiota afgeleide of gemodificeerde kleine moleculen te bieden. De selectie was gebaseerd op vijf criteria: representatie van belangrijke klassen microbiële metabolieten die betrokken zijn bij signalering tussen gastheer en microbiota; bekende of aannemelijke blootstelling van het distale intestinale slijmvlies; beschikbaarheid van ondubbelzinnige PubChem-identificatoren en canonieke structuren; moleculaire grootte en structurele hanteerbaarheid voor ligand-gebaseerde doelvoorspelling en docking; en eerdere aannemelijkheid voor epitheliale, neuro-immune, entero-endocriene, nucleaire receptor- of motiliteitsgerelateerde signalering bij IBS-C. Het geselecteerde panel omvatte butyraat en propionaat als SCFA's; chenodeoxycholzuur, lithocholzuur en ursodeoxycholzuur als galzuren; tryptamine, indol-3-propionzuur en indol-3-melkzuur als tryptofaan-afgeleide metabolieten; en urolithine A als een door darmmicrobiota afgeleide polyfenolmetaboliet5,6,7,8,9,10.
De meeste eerdere computationele en experimentele onderzoeken hebben individuele metaboliet-receptor- of metaboliet-enzymparen geïsoleerd bestudeerd, een aanpak die de gedistribueerde, convergente aard van microbiële metabolietsignalering over gastheerpaden heen niet vastlegt9,11. De integratie van meerdere analytische fasen biedt een wederzijds versterkende filtercapaciteit die geen enkele fase onafhankelijk kan leveren. Computationele targetvoorspelling aan de hand van gecureerde databases levert een brede set kandidaate gastheerproteïnen op voor elke metaboliet. Doorsneeing met ziekterelevante transcriptomische gegevens filtert deze set aanzienlijk, waarbij alleen kandidaten overblijven waarvan de transcripten in de context van de ziekte zijn veranderd. Pathway-verrijking en analyses van proteïne-proteïne-interactienetwerken mappen vervolgens de gereduceerde kandidatenlijst naar bekende biologische modules. Molecular docking biedt een eerste computationele beoordeling van de complementariteit van de bindingspocket voor elk kandidaatcomplex, en een aanvullende 200 ns molecular dynamics (MD) simulatie met MM-PBSA bindingsvrije-energie-decompositie voegt een tijdgevoelige, thermodynamische dimensie toe aan de structurele prioritering die niet enkel uit docking-scores beschikbaar is. Het onafhankelijk uitvoeren van elke stap, zonder systematische integratie en sequentiële filtering, zou resulteren in kandidatenlijsten die te breed zijn om experimenteel hanteerbaar te zijn en zou er niet in slagen om convergente pathway-architectuur te detecteren.
Binnen het kader van dit volledige protocol bedoelen we met de term “metaboliet-geassocieerd gen” (MAG) een menselijk gen waarvan het eiwitproduct is aangemerkt als een hypothetisch moleculair doelwit van één of meer metabolieten afkomstig uit het darmmicrobioom door ten minste één gecureerde computationele voorspellingsdatabase, en waarvan het transcript differentieel tot expressie komt in de ziekte-relevante transcriptomische dataset die wordt gebruikt om de workflow aan te tonen. Deze operationele definitie omvat bewust membraanreceptoren plus nucleaire receptoren, cytosolische enzymen, signaaleiwitten, peptidehormoonprecursors en andere intracellulaire eiwitten. De aanwijzing als MAG is geen experimenteel bewijs dat een metaboliet bindt, een eiwit-ligandcomplex vormt, een receptor activeert, de eiwitovervloed verandert of een ziekte veroorzaakt, maar een computationeel afgeleide, hypothese-genererende nominatie die experimentele validatie vereist.
Dit protocol beschrijft de volledige computationele workflow in acht fasen (Figuur 1>) met voldoende operationele details om onafhankelijke replicatie, aanpassing aan andere metabolietenpanels of ziekte-datasets en uitbreiding naar andere contexten van interacties tussen gastheer en microbiota mogelijk te maken. De workflow is expliciet opgezet als een kader voor hypothesegeneratie en structurele prioritering dat uitsluitend gebruikmaakt van publiek beschikbare omics- en structurele bronnen en op basis van computationele resultaten alleen geen conclusies trekt over veranderde metabolietconcentraties, receptoractivatietoestanden, veranderingen in eiwitexpressie, downstream signaleringsactiviteit of klinische significantie. Hier demonstreren we het protocol aan de hand van een praktijkvoorbeeld met negen metabolieten die zijn afgeleid van of gemodificeerd door de darmmicrobiota en de publieke IBS-C rectale mucosale transcriptomische dataset GSE36701, met als doel MAG's te identificeren en metaboliet-eiwitcomplexen te prioriteren voor subsequent experimentele follow-up.
Protocol
Voor de analyse werden uitsluitend openbaar beschikbare, gedeïdentificeerde transcriptomische gegevens uit GSE36701 en openbare chemische, eiwit- en structurele databanken gebruikt. De databanken werden geraadpleegd tussen januari en mei 2026. Elke latere toegangsdatum is gedocumenteerd in de aparte tabel met materialen.
1. Onderzoeksopzet, hardware- en softwarevereisten
- Definieer de workflow voordat u met de analyse begint. Gebruik acht fasen: metabolietselectie, targetvoorspelling, differentieel-expressieanalyse, overlap van targets en differentieel tot expressie gebrachte genen (DEG), proteïne-proteïne interactie (PPI) / pathway-verrijking, moleculaire docking, MD-simulatie en MM-PBSA schatting.
- Noteer dat docking, MD en MM-PBSA uitsluitend instrumenten zijn voor structurele prioritering. Interpreteer deze resultaten niet als experimenteel bewijs voor binding, receptoractivatie, verandering in proteïne-abundantie, therapeutische effectiviteit of ziektecausaliteit.
- Controleer de computerhardware voordat u MD-simulaties uitvoert. Gebruik een 64-bits Linux OS, een 6-core CPU of beter, een GPU-acceleratieplatform met ≥8 GB VRAM, of een equivalent GPU-acceleratieplatform met ≥8 GB VRAM met ten minste 8 GB VRAM, minimaal 32 GB RAM en ten minste 200 GB vrije opslagruimte per MD-systeem.
- Noteer de kernsoftware: een moleculaire dynamica-engine, software voor moleculaire docking van metabolietliganden aan targetproteïnen, chemische bestandsformaatconversie12, driedimensionale ligandgeneratie, ligandpreparatie, een toolkit voor docking-inputpreparatie, een moleculaire docking van metabolietliganden aan targetproteïnen, een programmeeromgeving voor algemeen gebruik, een statistische computeromgeving met een bio-informatica softwareframework en een pakket voor differentieel gen-expressieanalyse.
- Noteer de instrumenten voor structurele analyse: een webgebaseerd instrument voor de constructie van membraansystemen, een CHARMM-compatibele ligandparameterisatiedienst, een instrument voor de berekening van bindingsenergie via moleculaire mechanica/continuüm-oplosmiddel, een bibliotheek voor moleculaire topologie- en parameterconversie, een driedimensionaal moleculaire visualisatieprogramma en een instrument voor moleculaire visualisatie en tweedimensionale interactiediagrammen 2021 (zie de Tabel met materialen voor downloadlinks en versie-informatie).
- Noteer de exacte gebruikte proteïne-force field voor moleculaire dynamica-simulaties, CGenFF, CHARMM-GUI, R/bio-informatica softwareframework en de release-identificatoren van het instrument voor de berekening van bindingsenergie via moleculaire mechanica/continuüm-oplosmiddel in de Tabel met materialen/omgevingsbestand. Markeer ontbrekende identificatoren als "niet herstelbaar"; leid deze niet af.
2. Selectie van metabolieten en chemo-informatische karakterisering
- Definieer het metabolietenpaneel vóór de targetvoorspelling. Neem butyraat (PubChem CID: 264), propionaat (CID: 1032), chenodeoxycholzuur (CID: 10133), lithocholzuur (CID: 9903), ursodeoxycholzuur (CID: 31401), tryptamine (CID: 1150), indole-3-propionzuur (CID: 3744), indole-3-melkzuur (CID: 92904) en urolithine A (CID: 5488186) op.
- haal de canonieke Simplified Molecular Input Line Entry System (SMILES) en PubChem CID op voor elke metaboliet. Verifieer synoniemen en dubbele structuren vóór de targetvoorspelling. Sla de definitieve identificatoren op in het masterblad voor metabolieten.
- Dien de canonieke SMILES-strings in bij de webtool voor fysisch-chemische eigenschappen en ADME-voorspelling13 (zie Tabel van Materialen). Noteer het molecuulgewicht, het Topologische polaire oppervlak (TPSA), de consensus logP, waterstofbrugdonoren, waterstofbrugacceptoren, roteerbare bindingen, de voorspelde gastro-intestinale absorptie, de P-glycoproteïne-voorspelling en de Lipinski-, Veber-, Ghose-, Egan-, Muegge- en PAINS-alerts.
- Behoud metabolieten met een succesvolle structuurherkenning, een molecuulgewicht ≤500 Da en zonder PAINS-alerts. Noteer elk mislukt criterium en de beslissing om de metaboliet te behouden of uit te sluiten.
- Wijs ionisatietoestanden toe vóór de daaropvolgende targetvoorspelling en docking. Gebruik gedeprotoneerde carboxylaten voor butyraat en propionaat, neutrale carbonzuurvormen voor galzuren, geprotoneerd ammonium voor tryptamine en neutrale vormen voor de overige metabolieten.
3. Voorspelling van potentiële menselijke targets
- Open een tool voor de voorspelling van chemische-eiwitinteractiedoelen14 (zie Table of Materials). Voer de naam van elke metaboliet of het PubChem CID in, selecteer Homo sapiens (taxonomie-ID: 9606) en stel de minimale gecombineerde interactiescore in op ≥0.700.
- Geef in de voorspelling van chemische-eiwitinteractiedoelen prioriteit aan bewijskanalen uit experimentele en gecureerde databases. Download de volledige eiwitassociatietabel voor elke metaboliet.
- Open een programma voor moleculaire docking15 (zie Table of Materials). Dien elke canonieke SMILES-string in met Homo sapiens geselecteerd en behoud doelen met een waarschijnlijkheid van ≥0.70.
- Voeg de resultaten van de voorspelling van chemische-eiwitinteractiedoelen en het moleculaire dockingprogramma samen als een unieset voor elke metaboliet. Behoud elk doel dat aan een van de database-drempelwaarden voldoet en verwijder exacte dubbele vermeldingen van gensymbolen.
- Standaardiseer eiwitvermeldingen naar door het HUGO Gene Nomenclature Committee (HGNC) goedgekeurde gensymbolen met behulp van het mappen van eiwitidentificatoren naar gestandaardiseerde HGNC-goedgekeurde gensymbolen of de geïntegreerde database voor menselijke geninformatie (zie Table of Materials). Resolveer aliassen, verouderde symbolen en isovorm-annotaties naar één gensymbool per eiwit.
- Classificeer elk doel als een membraanreceptor, nucleaire receptor, enzym, intracellulair signaaleiwit, peptidehormoon, hormoongerelateerd eiwit of ander intracellulair eiwit. Noteer de klasse in de doeltabel.
4. Transcriptomische dataset en analyse van differentiële genexpressie
- Krijg toegang tot GSE36701 via de webgebaseerde tool voor differentiële genexpressieanalyse van NCBI16,17 (zie Tabel van materialen). Noteer dat de dataset expressiegegevens van rectale mucosa-biopten bevat van IBS-C, diarree-predominant prikkelbaar darmsyndroom (IBS-D), post-infectieuze IBS en gezonde vrijwilligersgroepen18.
- Zoek in GEO en ArrayExpress naar een onafhankelijke validatiecohort. Gebruik combinaties van IBS-C, constipation-predominant irritable bowel syndrome, rectale mucosa, colonic mucosa, biopsie, transcriptoom, microarray en RNA-seq. Noteer de repositories, zoektermen, zoekdatum en of er een vergelijkbare validatiedataset is geïdentificeerd.
- Start de webgebaseerde tool voor differentiële genexpressieanalyse vanuit het GSE36701-record (zie Tabel van materialen). Wijs de 18 IBS-C-monsters toe aan de IBS-C-groep, wijs de 40 gezonde vrijwilligers toe aan de controlegroep en laat de IBS-D- en post-infectieuze IBS-monsters niet toegewezen.
- Voer de differentiële expressieanalyse uit met behulp van het framework van het pakket voor differentiële genexpressieanalyse met Benjamini-Hochberg False discovery rate (FDR) correctie19. Download de volledige resultatentabel met probe ID, gensymbool, gentitel, logFC, AveExpr, gemodereerde t-statistiek, ruwe P-waarde en aangepaste P-waarde.
- Vouw probes samen tot vermeldingen op genniveau. Verwijder probes zonder gensymbolen; behoud de probe met de laagste FDR bij dubbele symbolen; en gebruik de grootste absolute logFC als beslissingsregel.
5. Overlapanalyse tussen target en deg en statistische beoordeling
- Kruis elke voorspelde targetlijst per metaboliet met de DEG-lijst op genniveau bij een FDR < 0,05. Noteer de overlappende genen, de herkomstmetaboliet, de logFC, de aangepaste P-waarde en de expressierichting.
- Voeg de metaboliet-specifieke overlaplijsten samen tot een niet-redundante MAG-lijst. Tel het totaal aantal voorspelde targets, de metaboliet-specifieke overlaps en het totaal aantal unieke MAGs.
- Beoordeel de directionele consistentie op probe-niveau voor genen met meerdere probes. Markeer elk gen waarbij de probes verschillen in expressierichting.
- Stel de contingentietabel voor de exacte toets van Fisher op met gebruik van het totaal aantal gene-collapsed entries, het totaal aantal DEGs, het totaal aantal unieke voorspelde targets en de geobserveerde MAGs. Bereken de eenzijdige P-waarde, de odds ratio en het 95% betrouwbaarheidsinterval met de implementatie van de exacte toets van Fisher.
- Als de achtergrond-DEG-rate 50% overschrijdt, rapporteer de overlap dan als beschrijvend in plaats van als onafhankelijk gevalideerde verrijking. Behandel uniforme downregulatie als een beschrijvend directioneel patroon, tenzij er een aparte directionaliteitstoets wordt uitgevoerd.
6. Analyse van het eiwit-eiwitinteractienetwerk en pathway-verrijking
- Dien de volledige unieke lijst met MAG's in bij protein-protein interaction network construction and pathway enrichment20 (zie Tabel met materialen). Selecteer Homo sapiens en stel de minimale interactiescore in op 0.700.
- Exporteer het gecombineerde Protein-protein interaction network construction and pathway enrichment-netwerk en de volledige interactietabel. Als text-mining leidt tot een kunstmatig dichte topologie, deselecteer dan text-mining en behoud de kanalen voor experimentele gegevens, co-expressie en databases.
- Genereer subnetwerken voor metabolietklassen voor SCFA-geassocieerde, galzuur-geassocieerde en tryptamine/serotonerge MAG's. Gebruik dezelfde organisme- en betrouwbaarheidsinstellingen als bij Protein-protein interaction network construction and pathway enrichment.
- Voer Protein-protein interaction network construction and pathway enrichment uit tegen de Kyoto Encyclopedia of Genes and Genomes (KEGG)21, Reactome22 en Gene Ontology (GO) Biological Process23,24. Pas Benjamini–Hochberg BH FDR <0.05 toe en exporteer alle verrijkingstabellen.
7. Moleculaire docking
- Haal experimenteel bepaalde receptorstructuren op uit de Research Collaboratory for Structural Bioinformatics Protein Data Bank RCSB PDB25 (zie Tabel met Materialen). Gebruik VDR/1DB1, NR1H4/FXR/3DCT, CASP3/2DKO en HTR2A/6A93 voor de vijf geprioriteerde eiwit-ligandcomplexen.
- Prepareer elke receptor door keten A te behouden en water, co-gecrystaliseerde liganden, cofactoren, ionen en niet-eiwit HETATM-records te verwijderen. Verwijder voor 6A93 het T4 lysozym-fusiesegment vóór de receptorpreparatie.
- Voeg polaire waterstofatomen toe, wijs Gasteiger-ladingen toe en sla elke receptor op als PDBQT met de molecular-structure toolkit. Inspecteer de protoneringstoestanden van histidine in de bindingsplaats vóór de PDBQT-conversie en documenteer de geselecteerde toestanden.
- Genereer de 3D-structuur van elk ligand in de chemical structure file-conversion toolkit. Minimaliseer de energie met het Universal Force Field (UFF) gedurende 500 stappen, wijs de ionisatietoestand bij pH 7.4 toe, wijs Gasteiger-ladingen toe en sla op als PDBQT.
- Definieer een dockingbox van 25 Å x 25 Å x 25 Å gecentreerd op het centroïde van het co-gecrystaliseerde ligand. Gebruik centra van (10, 19, 33) voor VDR, (137, 31, 78) voor FXR, (37, 34, 32) voor CASP3 en (12, −1, 61) voor HTR2A.
- Voer een moleculaire docking van metabolietliganden op doeleiwitten uit26,27 met exhaustiveness = 8, seed = 42, num_modes = 9 en energy_range = 3 kcal/mol. Registreer de hoogst gerangschikte Vina-score en de Root-mean-square deviation (RMSD)-waarden voor alle poses.
- Selecteer modus 1 voor elk geprioriteerd complex. Genereer tweedimensionale ligand-residue-diagrammen in een moleculaire visualisatie- en tweedimensionale interactiediagram-tool, en driedimensionale receptor-ligandweergaven in een driedimensionaal moleculair visualisatieprogramma.
- Voer redocking-controles uit voor VDR/1DB1 en FXR/3DCT. Accepteer de receptor-dockingopstelling wanneer de zware-atoom RMSD <2.0 Å is ten opzichte van de crystallografische pose.
- Voer cross-docking-controles uit door lithocholzuur (LCA) in CASP3 en tryptamine in VDR te docken. Vergelijk cognate- en non-cognate-scores en registreer gevallen waarin het scoreverschil <1.0 kcal/mol is.
8. Moleculaire dynamicasimulatie
- Genereer ligandparameters met een CHARMM-compatibele ligandparameterisatieservice28 (zie Table of Materials). Inspecteer alle penalty-scores en markeer elke parameter met een penalty >50.
- Converteer ligand stream-bestanden naar .itp- en .prm-bestanden die compatibel zijn met de molecular dynamics-engine met behulp van het force-field topologie-conversiescript. Combineer de topologiebestanden van het ligand en het eiwit voor elk complex.
- Pas hydrogen mass repartitioning toe met een library voor moleculaire topologie- en parameterconversie. Genereer waterige topologieën met het eiwit-force-field dat is gebruikt voor de molecular dynamics-simulaties29 en een expliciet three-site watermodel30.
- Solvatiseer de waterige complexen in een dodecahedrale box met een minimale afstand van 1.2 nm tussen het opgeloste bestand en de rand. Neutraliseer de systemen en voeg NaCl toe tot 0.15 M.
- Bouw het tryptamine-HTR2A membraansysteem met een webgebaseerde tool voor de constructie van membraansystemen31,32,33 (zie Table of Materials). Gebruik receptorcoördinaten die zijn uitgelijnd met een database voor membraan-eiwit oriëntatie34 (zie Table of Materials), een zuivere POPC-bilayer, waterlagen van 22.5 Å en 0.15 M NaCl.
- Minimaliseer de energie van alle systemen via steepest descent voor maximaal 50.000 stappen. Bevestig convergentie bij Fmax <1000 kJmol-1nm-1 vóór de equilibratie.
- Equilibreer de waterige systemen met fasen van een ensemble met een constant aantal deeltjes, volume en temperatuur (NVT) en een ensemble met een constant aantal deeltjes, druk en temperatuur (NPT). Equilibreer het membraansysteem met de webgebaseerde, zesstaps multistage workflow voor de preparatie en equilibratie van moleculaire systemen met geleidelijk vrijgegeven restraints.
- Voer voor alle vijf de complexen een productie-MD van 200 ns uit. Gebruik een tijdstap van 4 fs met Hydrogen mass repartitioning HMR, een V-rescale thermostaat bij 310 K, een Parrinello-Rahman barostaat bij 1 bar, Particle mesh Ewald (PME) elektrostatica35 en LINCS constraints36.
- Analyseer de uiteindelijke trajecten met utilities voor de analyse van molecular dynamics-trajecten. Bereken de backbone RMSD, Cα Root-mean-square fluctuation (RMSF), gyratie-straal, Solvent-accessible surface area (SASA) en eiwit-ligand waterstofbruggen, waarbij de laatste 150 ns als primair analysevenster dienen.
9. Schatting van de vrije bindingsenergie via MM-PBSA
- Extraheer trajectory-snapshots voor MM-PBSA-analyse. Gebruik 2.001 frames voor elk complex in waterige oplossing en 201 verwerkte frames voor het in het membraan ingebedde HTR2A-subsysteem.
- Voer de tool voor de berekening van de bindingsenergie via moleculaire mechanica/continuüm-oplosmiddel37 uit met Poisson-Boltzmann-solvatatie, interne diëlektrische constante = 1, externe diëlektrische constante = 80, SASA-gebaseerde apolaire solvatatie en zonder entropiecorrectie. Rapporteer de gemiddelde vrije bindingsenergie en de standaardafwijking.
- Voer per residu een decompositie uit voor alle vijf de complexen. Rapporteer stabiliserende en destabiliserende residuen met absolute bijdragen ≥0,5 kcalmol−1.
Resultaten
Kandidaat-doelwitten geassocieerd met metabolieten
De negen metabolieten produceerden heterogene voorspelde doelwitsets via een chemische-eiwitinteractie doelwitvoorspellingsprogramma en een moleculaire docking-programma. Propionaat, tryptamine, galzuren en urolithine A leverden verschillende doelwitten op met een bekende relevantie voor gastro-intestinale signalering. Het voorspelde doelwitlandschap omvatte canonieke membraanreceptoren, nucleaire receptoren, intracellulaire enzymen, signaleringsproteïnen en peptidehormoon-gerelateerde proteïnen. Downstream resultaten worden daarom beschreven als metaboliet-geassocieerde genen (MAG's) in plaats van bevindingen die uitsluitend betrekking hebben op receptoren (Tabel 1).
Benchmarking tegen gerapporteerde metaboliet-proteïne-interacties
Om de output van de target-voorspelling te benchmarken tegen bestaande experimentele kennis, werden de voorspelde relaties tussen metabolieten en targets ingedeeld in drie bewijsniveaus: (i) experimenteel ondersteunde directe of nauwe interacties op klasse-niveau tussen metabolieten en eiwitten, waarbij is gerapporteerd dat de metaboliet of een nauw verwante endogene metaboliet het gecodeerde eiwit bindt, activeert, inhibeert of functioneel reguleert; (ii) interacties ondersteund door pathways of target-klassen, waarbij het voorspelde target behoort tot een gevestigde metaboliet-responsieve pathway of receptorfamilie, maar direct bewijs voor het exacte metaboliet-eiwitpaar beperkt is; en (iii) uitsluitend computationele associaties waarvoor geen directe experimentele interactie is geïdentificeerd in de geraadpleegde literatuur. Deze benchmarking werd gebruikt om de voorspelde MAGs te contextualiseren, niet om ze te valideren.
Verschillende voorspellingen recapituleerden eerder gerapporteerde biologie. Propionaat-FFAR2 werd beschouwd als experimenteel ondersteund, aangezien FFAR2/GPR43 een canonieke receptor voor kortketenige vetzuren is. Butyraat-HDAC3 werd geclassificeerd als experimenteel of klasse-ondersteund, omdat butyraat een erkende histondeacetylase-remmer is en de voorspelde overlap betrekking had op een lid van de HDAC-familie. Galzuur-geassocieerde voorspellingen met betrekking tot NR1H4/FXR en VDR werden beschouwd als ondersteund door gevestigde biologie van galzuur-kernreceptoren, in het bijzonder voor hydrofobe galzuren zoals LCA; FXR-voorspellingen geassocieerd met ursodeoxycholzuur (UDCA) werden met voorzichtigheid geïnterpreteerd, omdat UDCA over het algemeen een zwakkere of contextafhankelijke FXR-ligand is. Tryptamine-geassocieerde voorspellingen voor HTR1B, HTR2A, HTR2B en HTR6 werden geclassificeerd als ondersteund door de serotonerge route in plaats van bevestigde directe receptorspecifieke interacties, omdat tryptamine een microbiële monoamine is afgeleid van tryptofaan en serotonine-receptoren gevestigde regulatoren zijn van gastro-intestinale motiliteit en secretie. Urolithine A-CASP3 werd beschouwd als route-ondersteund op basis van gepubliceerde verbanden tussen urolithine A en apoptotische/caspase-gerelateerde responsen, maar niet op basis van direct bewijs voor CASP3-binding. Indool-3-melkzuur-KYAT1 en indool-3-propionzuur-KYAT1 werden behouden als uitsluitend computationele hypothesen, omdat de bredere literatuur gastsignalering door microbiële indoolderivaten ondersteunt, maar geen directe KYAT1-binding door deze specifieke metabolieten7,8,38,39,40.
Bijgevolg maakt Tabel 1 onderscheid tussen computationele target-nominatie en het niveau van voorafgaande experimentele ondersteuning of pathway-ondersteuning. Per target wordt daarnaast de voorspellingsbron vermeld (een voorspelling van chemische-eiwitinteractie-targets, een molecular docking-programma, of beide), de gecombineerde interactiescore voor de voorspelling van chemische-eiwitinteractie-targets, en de waarschijnlijkheid van het molecular docking-programma wanneer het target via een molecular docking-programma is geïdentificeerd. Voorspelde targets zonder direct voorafgaand experimenteel bewijs worden beschreven als kandidaat-metaboliet-geassocieerde genen die onafhankelijke validatie op eiwitniveau en ligand-responsvalidatie vereisen.
Overlap tussen voorspelde targets en differentieel tot expressie gebrachte genen bij IBS-C
De doorsnede van de gecombineerde voorspelde targetlijsten en de resultaten van de differentiële expressie op genniveau identificeerde 17 unieke voorspelde metaboliet-geassocieerde genen die significant differentieel tot expressie kwamen in de vergelijking tussen IBS-C en gezonde vrijwilligers. Alle 17 genen waren downgereguleerd. De set omvatte membraan- en kernreceptoren (CASR, FFAR2, GPR68, HTR1B, HTR2A, HTR2B, HTR6, NR1H4, TBXA2R, VDR) en niet-receptoreiwitten (CASP3, GCG, GNAQ, GPHN, HDAC3, KYAT1, MLN) (Tabel 1, Figuur 2A,B).
Alle 17 MAG's voldeden aan een drempelwaarde voor de false discovery rate (FDR) van minder dan 0,05; 16 van de 17 voldeden aan de strengere FDR < 0,01, waarbij het resterende gen (HTR1B) significant was bij FDR < 0,05. Zeven van de 17 targets (CASP3, GCG, GNAQ, GPHN, GPR68, HDAC3, TBXA2R) voldoen zowel aan FDR < 0,01 als aan een absolute log2 fold change van meer dan 1,0 (logFC-bereik −1,34 tot −1,10), wat duidt op een sterke en consistente downregulatie voor deze subset. De overige targets vertoonden een matige maar statistisch significante downregulatie (|logFC| variërend van 0,45 tot 0,97). Dit uniforme beschrijvende patroon werd met voorzichtigheid geïnterpreteerd, rekening houdend met de genoombrede expressiekenmerken van de dataset (zie onderstaande statistische beoordeling).
Statistische beoordeling van de overlap van doel-DEG's
Om de statistische significantie van de overlap van 17 genen formeel te beoordelen, werd eenzijdige Fisher's exact test toegepast, waarbij de 17 voorspelde doelgenen als queryset dienden en alle 18.296 unieke gen-gecollapseerde vermeldingen die in GSE36701 werden gedetecteerd als genomische achtergrond. Van deze achtergrond waren 17.296 genen (94,5%) differentieel tot expressie gebracht bij een FDR < 0,05, wat wijst op een vrijwel universele transcriptionele onderdrukking in de vergelijking van het IBS-C rectale slijmvlies. Alle 17 voorspelde doelgenen bevonden zich tussen de differentieel tot expressie gebrachte genen (geobserveerde overlap 17/17, 10%). Gegeven de achtergrondrate van differentiële expressie van 94,5%, is de verwachte overlap voor elke willekeurig geselecteerde set van 17 genen 16,1 genen. De Fisher's exact test leverde p = 0,384 op met een continuïteitscorrectie odds ratio van 2,03 (95% betrouwbaarheidsinterval 0,12–3,73), wat niet statistisch significant was bij α = 0,05 (Figuur 3A–C).
Dit resultaat geeft aan dat de waargenomen overlap van 17/17 niet groter is dan de overlap die op basis van toeval wordt verwacht onder het genoombrede expressieprofiel van deze dataset. Bijgevolg worden deze bevindingen geïnterpreteerd als een beschrijvend directioneel patroon, waarbij alle 17 voorspelde targets consistent en significant downgereguleerd waren in IBS-C rectale mucosale weefsels, in plaats van als bewijs voor statistische verrijking of onafhankelijke validatie ten opzichte van een genomische achtergrond. Formele verrijkingstesten zouden replicatie vereisen in transcriptomische datasets met selectievere differentieel-expressieprofielen, waarin aanzienlijk minder dan de helft van alle genen significantie bereikt. Er moet worden benadrukt dat de uniforme downregulatie van alle 17 overlappende genen een beschrijvende observatie is en geen afzonderlijk gevalideerd statistisch resultaat, aangezien de differentieel tot expressie gebrachte achtergrond van deze dataset zelf overwegend downgereguleerd is; een gedeelde neerwaartse richting onder de overlappende genen is dus te verwachten en is niet onderworpen aan een formele directionaliteitstest. Deze uniforme richting mag daarom niet worden geïnterpreteerd als onafhankelijk statistisch bewijs voor gecoördineerde, metaboliet-specifieke regulatie.
Metabolietspecifieke patronen
Propionaat had het grootste aantal overlappende genen, waaronder CASR, FFAR2, GCG, GNAQ, GPHN, GPR68, MLN en TBXA2R, wat wijst op een mogelijke betrokkenheid van signalering die reageert op kortketenige vetzuren en Gq-geassocieerde signalering. Butyraat overlapte met HDAC3, wat consistent is met de butyraat-geassocieerde histondeacetylase-biologie, hoewel mRNA-downregulatie alleen geen gewijzigde butyraatgevoeligheid vaststelt. Galzuur-geassocieerde overlap omvatte de kernreceptoren VDR en NR1H4, beide erkende effectoren van galzuursignalering in de darm38,39. Tryptamine overlapte met HTR1B, HTR2A, HTR2B en HTR6, waardoor serotonerge signalering als kandidaatmodule wordt aangewezen, een systeem met goed gedocumenteerde rollen in de gastro-intestinale motiliteit en secretie40. Indool-3-melkzuur en indool-3-propionzuur overlapten met KYAT1, en urolithine A overlapte met CASP3.
Pathwayverrijking
Functionele verrijkingsanalyse van de 17 overlappende genen identificeerde routes gerelateerd aan downstream-signalering van G-eiwitgekoppelde receptoren (GPCR), Gαq-signalering, binding van GPCR-liganden, serotonerge synapsen, neuroactieve ligand-receptorinteracties, calciumsignaaltransductie, cAMP-signalering en peptidehormoonsecretie. Deze resultaten zijn consistent met de samenstelling van de genset en ondersteunen de biologische coherentie ervan, maar ze weerspiegelen de functionele annotatie van de ingediende genen in plaats van onafhankelijk bewijs voor activiteit op routeniveau.
Structuur van het eiwit-eiwitinteractienetwerk
De constructie van het eiwit-eiwitinteractienetwerk en de pathway-enrichmentanalyse werden geïnterpreteerd over drie complementaire netwerken. In het gecombineerde meta-netwerk van 17 genen (Netwerk 1) was de meest evidente, door annotaties ondersteunde structuur een GNAQ-gecentreerde GPCR/Gαq-signaleringscomponent die GNAQ koppelde aan receptor-geassocieerde genen, waaronder TBXA2R, CASR, HTR2A en HTR2B. Een beperkte connectiviteit van serotonine-receptoren bleef behouden, het meest prominent tussen HTR2A en HTR2B, terwijl verschillende andere genen geïsoleerd of zwak verbonden bleven bij de geselecteerde betrouwheidsdrempel. Het propionaat-specifieke netwerk (Netwerk 2) vertoonde een meer beperkte topologie, waarbij GNAQ annotatie-ondersteunde koppelingen behield met CASR en TBXA2R, terwijl FFAR2, GPR68, GCG, GPHN en MLN geïsoleerd of zwak verbonden waren. Het tryptamine/serotonine-netwerk (Netwerk 3) omvatte HTR1B, HTR2A, HTR2B en HTR6; binnen deze subset vertoonden HTR2A en HTR2B de belangrijkste annotatie-ondersteunde verbinding, terwijl HTR1B en HTR6 niet direct verbonden waren bij de gekozen drempelwaarde (Figuur 4A–C).
Moleculaire docking
Moleculaire docking werd uitgevoerd op vijf geselecteerde metaboliet-eiwitcomplexen. De paren van galzuren en nucleaire receptoren vertoonden gunstigere Vina-scores dan urolithine A-CASP3 en tryptamine-HTR2A. LCA-VDR had de beste score met −10.0 kcal/mol, gevolgd door LCA-NR1H4/FXR (−9.9 kcal/mol) en UDCA-NR1H4/FXR (−9.4 kcal/mol). Urolithine A-CASP3 en tryptamine-HTR2A hadden lagere, maar nog steeds redelijke scores van −7.1 kcal/mol (Tabel 2).
Voor het LCA-VDR-complex (PDB ID: 1DB1) werd de voorspelde pose ondersteund door een conventionele waterstofbrug tussen de LCA-carboxylzuurstof en Ser278 (4,29 Å), samen met uitgebreide hydrofobe contacten met Leu230, Val234, Trp286, Val300, His305, Tyr295, Leu23 en His397, en aanvullende van der Waals-contacten met Met272, Leu313, Ile271, Ile268, Leu309, Phe42, Val418, Ala231, Ala303, Cys28, Ser275 en Phe150. De best beoordeelde pose had een Vina-score van −10,0 kcal/mol, een caviteitsgrootte van 2055 Å3 en een gridcentrum van (10, 19, 3) (Tabel 3, Figuur 5A,B).
Voor het LCA-NR1H4/FXR-complex (PDB ID: 3DCT) ging de docking-score van −9.9 kcal/mol gepaard met voorspelde waterstofbruggen met His294 en Ile35, een π-Sigma-interactie met His294, en hydrofobe Alkyl- of π-Alkyl-contacten met Met290, Met328, Ala291, Leu287, Ile352 en His47, waarbij verdere van der Waals-contacten de accommodatie van het steroïde skelet in de FXR-pocket ondersteunden (Tabel 4, Figuur 6A,B).
De voorspelde pose van het UDCA-NR1H4/FXR-complex (PDB ID: 3DCT) vertoonde een conventionele waterstofbrug met His47 (3,6 Å), een andere waterstofbrug met Gly32 (3,46 Å), een π-anioninteractie met Val325 (4,96 Å) en een koolstof-waterstofbinding met Trp469 (4,51 Å). De interactiekaart identificeerde daarnaast ongunstige donor-donorkontacten met Arg395 (3,89 Å) en Gln396 (3,40 Å), wat suggereert dat de lagere Vina-score van UDCA vergeleken met LCA in dezelfde receptorpocket mogelijk te wijten is aan minder gunstige lokale geometrie of elektrostatica (Tabel 5, Figuur 7A,B).
In het urolithine A-CASP3-complex (PDB ID: 2DKO) vertoonde de voorspelde bindingsmodus conventionele waterstofbruggen met Gln161 (3,78 en 4,19 Å), Ser120 (3,95 Å) en Arg207 (3,05 en 3,7 Å), en werd deze verder gestabiliseerd door π-Kation-interacties met Arg207, een π-Donor waterstofbrug met Cys163, en aanvullende π-Alkyl- en van der Waals-contacten met Arg64, Ala162, His121, Ser205 en Trp206 (Tabel 6, Figuur 8A,B).
Voor het tryptamine-HTR2A complex (PDB ID: 6A93) werd de voorspelde pose gestabiliseerd door een elektrostatische zoutbrug tussen de geprotoneerde amine van tryptamine en Asp15, het geconserveerde aspartaat van transmembraanhelix 3 (D3.32 in de Ballesteros-Weinstein nummering) dat de geprotoneerde amine van aminerge liganden verankert in serotonine- en aanverwante receptoren41,42,43, samen met waterstofbruggen met Thr160 en Ser159, aromatische contacten met Phe340 en Trp36, en π-alkylinteracties met Val156 en Ile163. Aanvullende van der Waals-contacten met Tyr370, Phe39, Ser242, Phe243, Phe32 en Leu123 ondersteunden een orthosterisch pocket-bindingspatroon (Tabel 7, Figuur 9A,B).
Validatie van het docking-protocol
Om de betrouwbaarheid van het docking-protocol te evalueren, werden twee complementaire controle-experimenten uitgevoerd. Voor de redocking-controles (positieve controles) werden co-gekristalliseerde liganden uit hun referentie-röntgenstructuren geëxtraheerd en opnieuw gedockt in hun natuurlijke bindingsplaatsen. De best scorende voorspelde pose voor de vitamine D-analoog VDX in VDR/1DB1 week 0,87 Å af van de kristallografische positie, en het co-kristal ligand WAY-362450 in FXR/3DCT week 1,79 Å af; beide waarden lagen onder de conventionele acceptatiedrempel van 2,0 Å, wat de geometrische validiteit van het docking-protocol voor deze receptorsystemen ondersteunt (Figuur 10A,B). Voor de cross-docking-controles (negatieve controles) werd lithocholzuur gedockt in caspase-3 (2DKO), een cysteïne-protease waarvoor het geen bekend ligand is, wat resulteerde in een voorspelde score (−8,3 kcal/mol) die 1,7 kcal/mol zwakker was dan bij het cognate target VDR (−10,0 kcal/mol), wat consistent is met de voorspelde selectiviteit van de bindingsplaats. Tryptamine gedockt in VDR leverde een voorspelde score op van −6,4 kcal/mol vergeleken met −7,1 kcal/mol bij het cognate HTR2A-target, een verschil van 0,7 kcal/mol dat binnen de gerapporteerde onzekerheid valt van scores bij moleculaire docking van metaboliet-liganden aan target-eiwitten en daarom slechts een bescheiden voorspelde selectiviteit voor dit kleinere ligand aangeeft (Figuur 10C). Samen geven deze controles aan dat het docking-protocol bekende bindingsgeometrieën reproduceert en onderscheid maakt tussen cognate en non-cognate paren onder de geteste condities, terwijl de overige computationele voorspellingen geen vervanging vormen voor experimentele affiniteitsmetingen (Tabel 8).
Moleculaire dynamicasimulatie
Moleculaire dynamicasimulaties werden uitgevoerd voor de vijf geprioriteerde complexen over productietrajecten van 20 ns. De vier oplosbare en nucleaire receptorcomplexen werden gesimuleerd in een expliciet waterig oplosmiddel, terwijl het tryptamine-HTR2A-complex werd gesimuleerd in een expliciete POPC-lipide dubbellaag om een fysiologisch passende membraanomgeving te bieden voor deze G-eiwitgekoppelde receptor. Analyses testten de dynamische stabiliteit van de gedockeerde poses onder tijdsafhankelijke omstandigheden en maakten een vergelijking mogelijk van het relatieve structurele gedrag tussen de complexen (Tabel 9).
Het RMSD-profiel van het LCA-VDR/1DB1-complex vertoonde een korte equilibratieperiode tijdens de eerste 10 ns, gevolgd door een stabiel plateau, met fluctuaties voornamelijk in het bereik van 0,20–0,28 nm (Figuur 11A). De RMSF-waarden waren laag en de backbone-fluctuaties waren < 0,15 nm voor de meeste residuen (Figuur 1B). Waterstofbruganalyse toonde een persistent netwerk van 2–5 waterstofbruggen, met incidentele stijgingen tot 7 (Figuur 1C). De gyratie-straal (Rg) bleef binnen het bereik van 1,25–1,75 nm en het oplosmiddeltoegankelijke oppervlak (SASA) bleef rond de 130 nm2 (Figuur 1D,E).
Het urolithin A-CASP3/2DKO-complex vertoonde een grotere dynamische activiteit. De RMSD nam aanvankelijk toe en oscilleerde vervolgens tussen 0,4 en 0,7 nm, met een kortstondige gebeurtenis met een hoge afwijking rond 165 ns (Figuur 12A). RMSF-analyse toonde een hoge mobiliteit op residuniveau, met de grootste fluctuaties in de flexibele loop-regio rond residu 175 (Figuur 12B). Waterstofbrug-analyse onthulde een aanvankelijk uitgebreid netwerk van ongeveer 2–5 bindingen gedurende de eerste 30–40 ns, gevolgd door grotendeels 0 tot 2 intermitterende bindingen (Figuur 12C). De overeenkomstige profielen van de gyratie-straal en SASA zijn weergegeven in Figuur 12D,E.
Voor de NR1H4/FXR (3DCT) galzuursystemen bleef het RMSD-profiel van de backbone gedurende het grootste deel van de trajectorie binnen een relatief nauw bereik (Figuur 13A), terwijl het RMSF-profiel een lagere mobiliteit in de kernregio's en hogere fluctuaties in de flexibele regio's vertoonde (Figuur 13B). Het LCA-3DCT-complex behield ongeveer drie tot vier persistente waterstofbruggen gedurende de gehele trajectorie, terwijl het UDCA-3DCT-complex een grotere fluctuatie van waterstofbruggen vertoonde en een afname van de waterstofbinding na ongeveer 125 ns. De gyratie-radiusprofielen voor de met LCA- en UDCA-gebonden systemen worden respectievelijk getoond in Figuur 13C,D, en de bijbehorende SASA-profielen worden getoond in Figuur 13E,F.
Membraanmoleculaire dynamica van het tryptamine-HTR2A-complex
Het tryptamine-HTR2A/6A93-complex werd gesimuleerd gedurende 20 ns binnen een expliciete POPC-lipide dubbellaag bestaande uit 258 lipidemoleculen, een expliciet drie-site watermodel en 0,15 M NaCl, voor een totale systeemgrootte van ongeveer 100.925 atomen3,4,45. De receptor bleef gedurende de gehele traject stabiel ingebed in de dubbellaag (Figuur 14). De RMSD van de backbone steeg van ongeveer 0,10 nm naar een stabiel plateau rond 0,15–0,20 nm binnen de eerste 10 ns en bleef daarna stabiel, waarbij alle waarden onder de 0,25 nm lagen, wat aangeeft dat de receptor een stabiele conformatie behield in de membraanomgeving zonder globale ontvouwing (Figuur 15A). De RMSF per residu vertoonde lage fluctuaties in de transmembraan helicale kern met de verwachte hogere mobiliteit in de loop- en terminale regio's, wat consistent is met de typische flexibiliteit van GPCR's (Figuur 15B). De gyratie-straal was strikt beperkt tot ongeveer 2,06 en 2,12 nm, en de SASA fluctueerde binnen een smalle band zonder progressieve drift, wat beiden bevestigt dat het compacte transmembraanbundel behouden bleef (Figuur 15C,D).
Waterstofbrugvorming tussen het eiwit en het ligand bleef gedurende de gehele trajectorie behouden (Figuur 15E), met aanzienlijke schommelingen in het aantal waterstofbruggen, variërend van 1 tot 3. Om specifiek de persistentie van de cruciale ionische interactie te evalueren, werd de minimale afstand tussen de geprotoneerde ammoniumstikstof van tryptamine en de carboxylaat-zuurstofatomen van Asp15 (D3.32) gedurende de gehele trajectorie gemonitord. Deze afstand bleef nauw gedistribueerd rond een gemiddelde van 0.270 nm (minimum 0.247 nm, maximum 0.424 nm), en het zoutbrugcontact (< 0.4 nm) werd gedurende 9,9% van de simulatie behouden met slechts twee korte voorbijgaande uitschieters en zonder aanhoudende dissociatiegebeurtenis (Figuur 16). Deze resultaten suggereren dat de geconserveerde Asp15 ionische interactie voldoende was om de tryptamine binnen de orthosterische pocket van HTR2A te stabiliseren gedurende de membraansimulatie.
MM-PBSA bindingsvrije energie en per-residu decompositie
MM-PBSA-analyse werd uitgevoerd om een extra energetische prioriteringlaag toe te voegen aan de vijf complexen (Tabel 10). Voor de vier waterige complexen identificeerde de per-residu decompositie de belangrijkste energetische bijdragen voor elke voorspelde bindingsmodus. In het LCA-VDR/1DB1-complex hadden het ligand en Gln317 een gunstige bijdrage, terwijl Trp286 een ongunstige bijdrage had. In het urolithine A-CASP3/2DKO-complex vertoonden Arg64 en Arg207 sterk negatieve per-residu bijdragen, wat duidt op substantiële polaire of elektrostatische stabilisatie; desondanks bleef de bijbehorende trajectory zeer dynamisch, wat aantoont dat gunstige energetica op residuniveau alleen geen aanhoudende complexstabiliteit garanderen. Voor de 3DCT-systemen werd de LCA-binding primair gedreven door Arg31, terwijl UDCA-binding betrokken was bij een meer verspreid energetisch netwerk bestaande uit Glu326, Asp394, Arg395, Arg441 en Asp470. Over de vier waterige systemen heen ondersteunde de MM-PBSA-decompositie de relatieve prioritering van de LCA-gebaseerde complexen.
Voor het membraan-ingebedde tryptamine-HTR2A/6A93-complex werd een MM-PBSA-analyse uitgevoerd op het eiwit-ligand-subsysteem dat uit de dubbellaag-trajectory was geëxtraheerd46,47. Gunstige bijdragen werden waargenomen voor het ligand en Asp15 (D3.32), wat bijver weg de dominante stabiliserende bijdrage op residuniveau was, in overeenstemming met de zoutbruginteractie die werd geïdentificeerd in zowel de docking- als de trajectory-afstandanalyses. Trp137 vertoonde de grootste ongunstige bijdrage per residu van de omringende residuen in de orthosterische pocket (Ser86, Phe87, Phe13, Phe140, Phe141, Val156, Ser159, Thr160, Ile163, Val167, Tyr171), die samen het aromatische en polaire contactnetwerk vormen dat de bindingspocket bekleedt. Deze waarden vertegenwoordigen relatieve computationele schattingen voor structurele prioritering en zijn geen experimentele bindingsaffiniteiten.
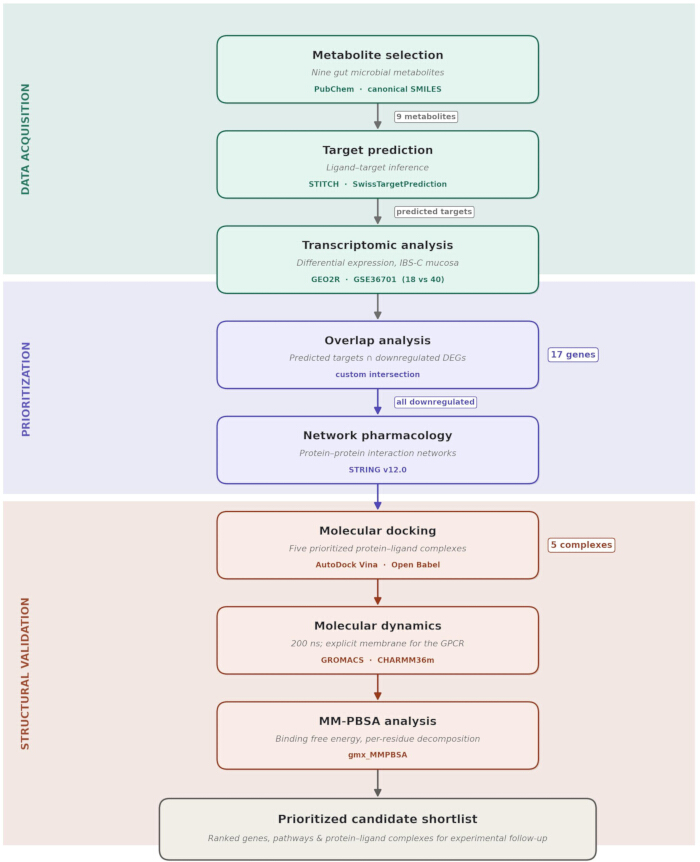
Figuur 1Computationele workflow voor prioritering van gastheergenen geassocieerd met metabolieten bij IBS-C. Schematische weergave van de workflow in acht fasen waarin metabolietselectie, doelwitvoorspelling, transcriptomische differentiële expressie, overlapanalyse, netwerk- en pathway-verrijking, moleculaire docking, moleculaire dynamicasimulatie en MM-PBSA-bindingsvrije-energieanalyse zijn geïntegreerd. Klik hier om een grotere versie van deze figuur te bekijken.
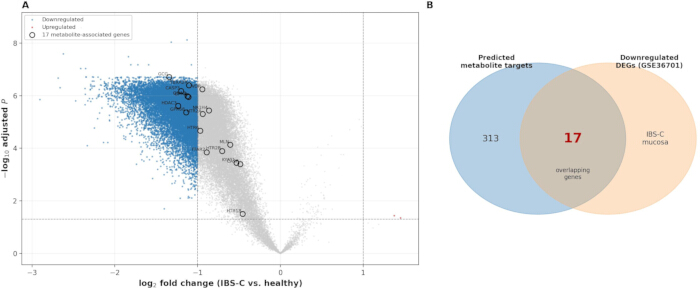
Figuur 2Analyse van differentiële expressie en overlap tussen metabolieten en targets in het mucosa bij IBS-C. (A) Volcano-plot van differentiële expressie op genniveau in GSE36701. Blauwe punten: significant downgereguleerde genen; rode punten: significant upgereguleerde genen; grijze punten: niet-significante genen. Geselecteerde overlappende metaboliet-geassocieerde genen zijn gelabeld. (B) Venn-diagram dat de overlap laat zien tussen 30 unieke voorspelde metabolietdoelen en downgereguleerde genen in GSE36701; 17 genen waren gedeeld. Klik hier om een grotere versie van deze figuur te bekijken.
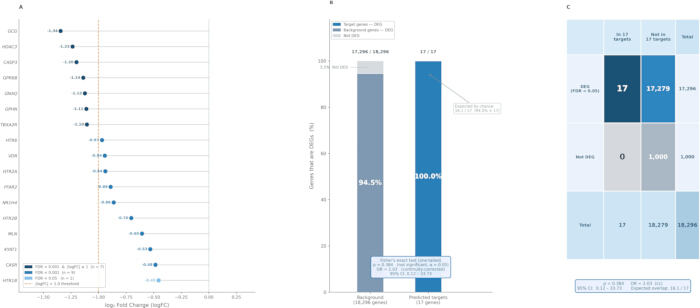
Figuur 3Statistische beoordeling van de 17 voorspelde metaboliet-doelgenen tegenover GSE36701. (A) Per gen log2-vouwverandering voor alle 17 genen, ingekleurd naar significantieniveau. (B) Differentieel expressiepercentage van achtergrondgenen versus voorspelde targets, met de exacte test van Fisher. (CEen twee-bij-twee contingentietabel wordt gebruikt voor de exacte toets van Fisher. Alle 17 targets waren significant gedownreguleerd; de overlap wordt geïnterpreteerd als een beschrijvend directioneel patroon in plaats van een statistische verrijking. Klik hier om een grotere versie van deze afbeelding te bekijken.
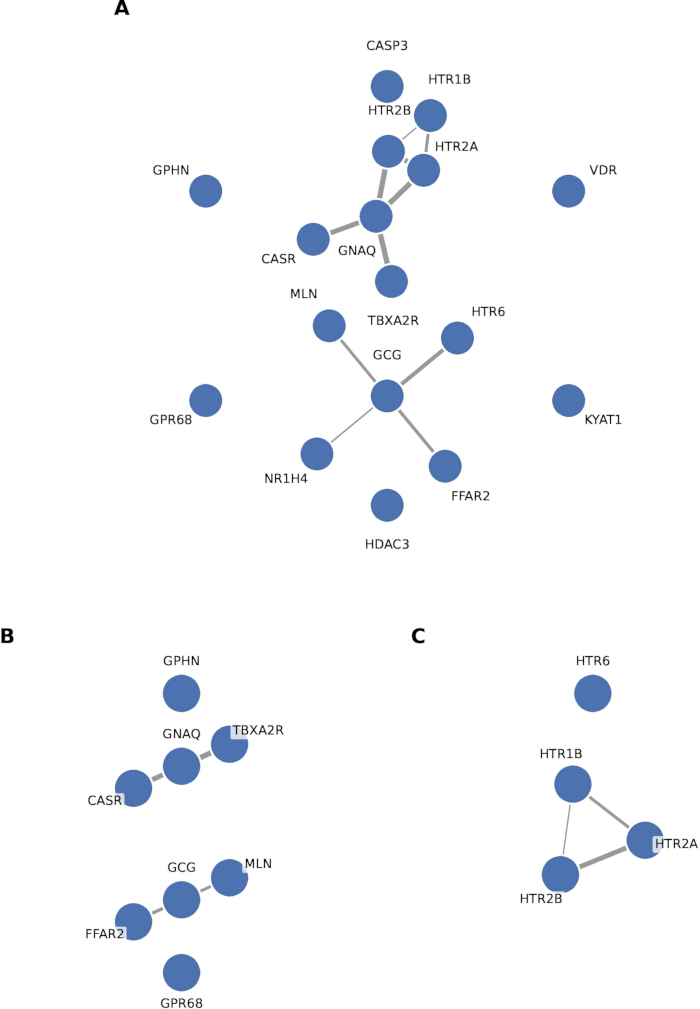
Figuur 4Constructie van een samengesteld eiwit-eiwitinteractienetwerk en pathway-verrijking van eiwit-eiwitinteractienetwerken van overlappende metaboliet-geassocieerde genen. (A) Netwerk 1: gecombineerd metanetwerk van alle 17 genen. (B) Netwerk 2: propionaat-specifiek netwerk van acht genen (CASR, FFAR2, GCG, GNAQ, GPHN, GPR68, MLN, TBXA2R). (C) Netwerk 3: tryptamine/serotoninenetwerk van vier genen (HTR1B, HTR2A, HTR2B, HTR6). Netwerken werden gegenereerd voor Homo sapiens als minimum, gebruikmakend van eiwit-eiwitinteractienetwerconstructie en pathway-enrichment confidence ≥ 0,70. Randen vertegenwoordigen annotatie-ondersteunde functionele associaties. Klik hier om een grotere versie van deze figuur te bekijken.
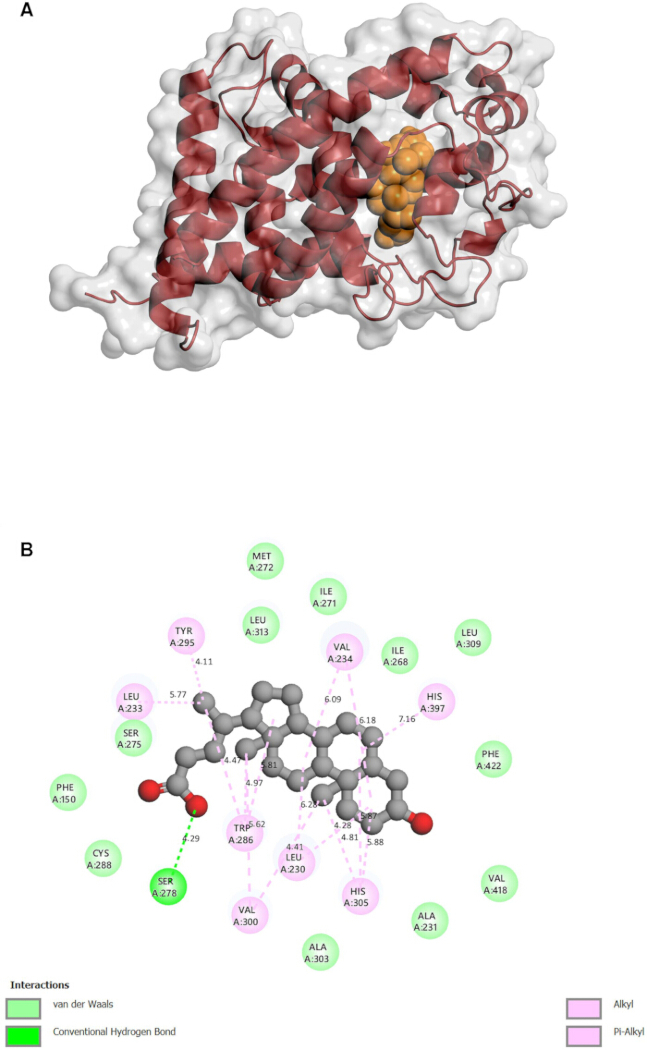
Figuur 5Driedimensionale en tweedimensionale structurele weergave van lithocholzuur in complex met VDR (PDB ID: 1DB1). (A) Driedimensionale oppervlakte- en cartoonweergave waarbij lithocholzuur als sferen wordt weergegeven. (B) Tweedimensionale interactiekaart die de Ser278 waterstofbrug en de omringende hydrofobe en van der Waals-contacten laat zien. Klik hier om een grotere versie van deze figuur te bekijken.
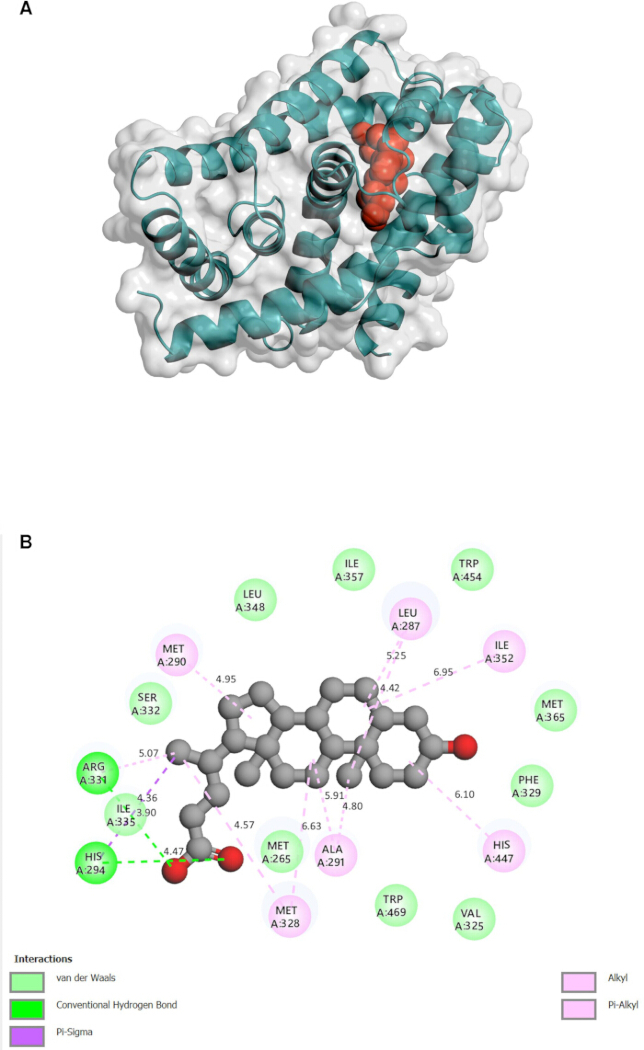
Figuur 6Driedimensionale en tweedimensionale structurele weergave van lithocholzuur in complex met NR1H4/FXR (PDB ID: 3DCT). (A) Driedimensionale oppervlakte- en cartoonweergave. (B) Tweedimensionale interactiekaart waarop waterstofbrugvorming met His294 en Ile35, een π-sigma-interactie en omliggende contacten worden weergegeven. Klik hier om een grotere versie van deze figuur te bekijken.
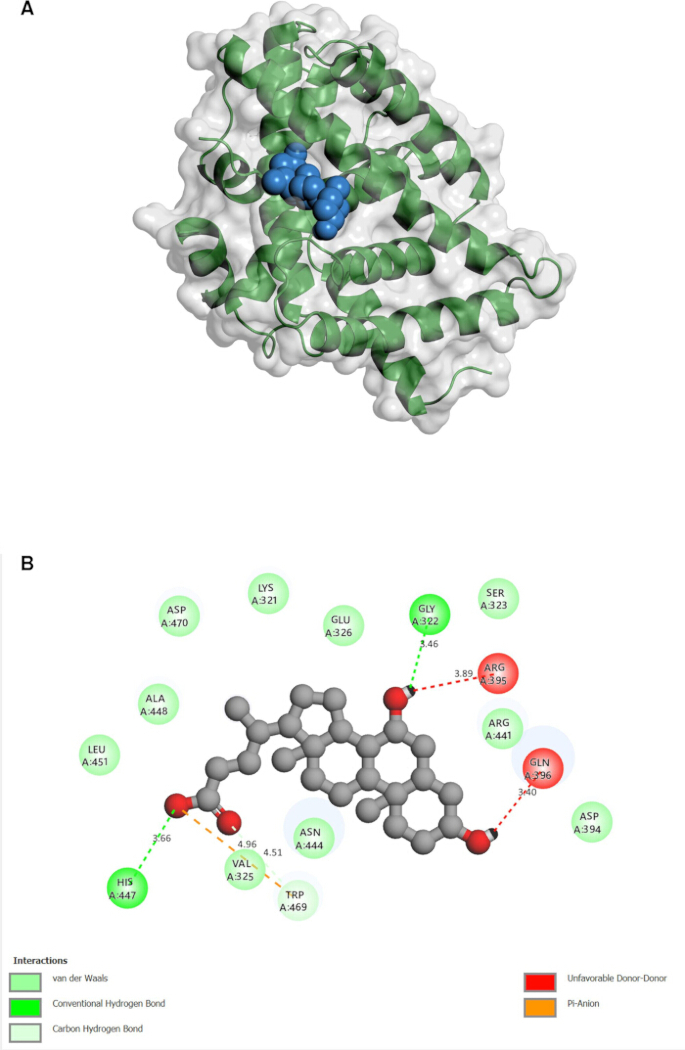
Figuur 7Driedimensionale en tweedimensionale structurele weergave van ursodeoxycholzuur in complex met NR1H4/FXR (PDB ID: 3DCT). (A) Driedimensionale oppervlakte- en cartoonweergave. (BTweedimensionale interactiekaart waarop waterstofbruggen met His47 en Gly32, een π-anioninteractie met Val325, een koolstof-waterstofbinding met Trp469 en ongunstige donor-donorcontacten met Arg395 en Gln396 worden weergegeven. Klik hier om een grotere versie van deze figuur te bekijken.
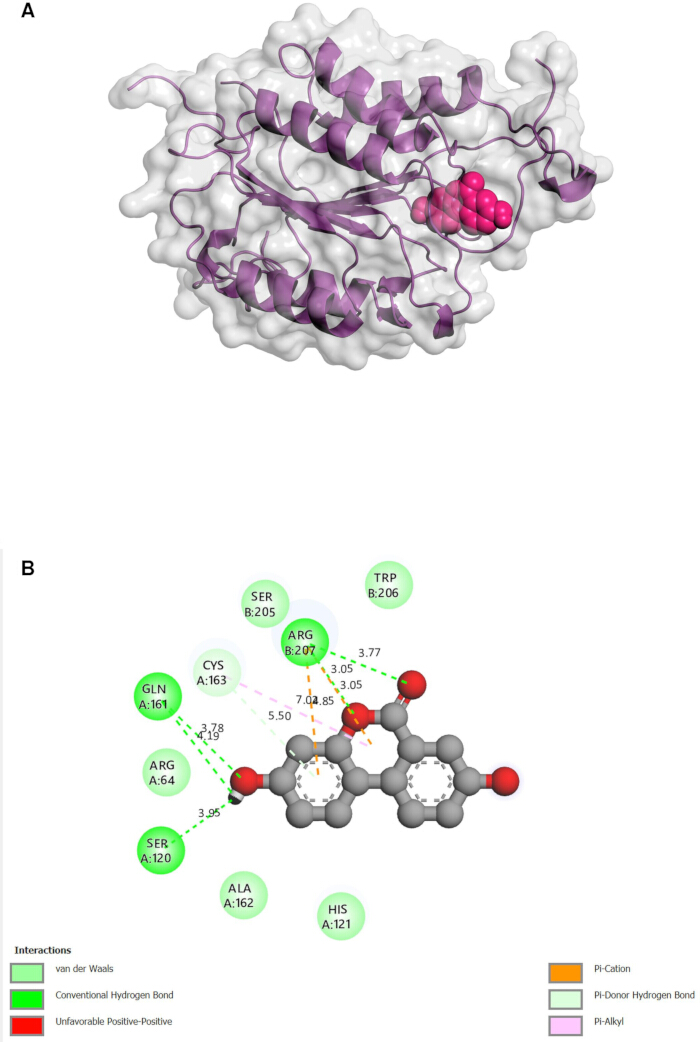
Figuur 8Driedimensionale en tweedimensionale structurele weergave van urolithine A in complex met CASP3 (PDB ID: 2DKO). (A) Driedimensionale oppervlakte- en cartoonweergave. (B) Tweedimensionale interactiekaart die waterstofbruggen met Gln161, Ser120 en Arg207, π-kation-interacties met Arg207, een π-donor-waterstofbrug met Cys163 en omringende contacten laat zien. Klik hier om een grotere versie van deze figuur te bekijken.
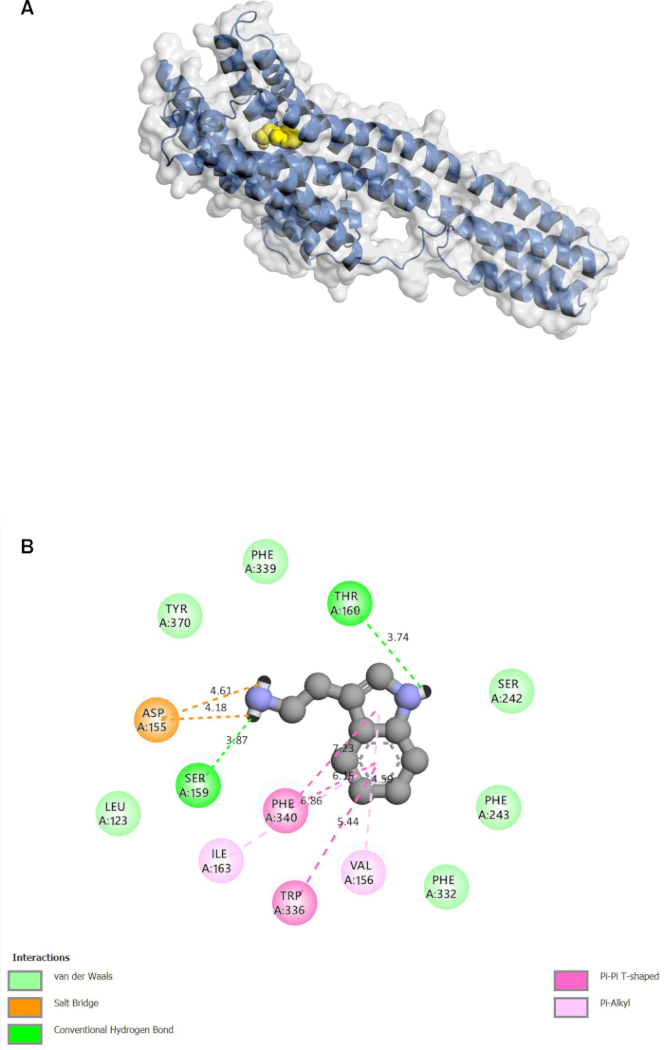
Figuur 9Driedimensionale en tweedimensionale structurele weergave van tryptamine in complex met HTR2A (PDB ID: 6A93). (A) Driedimensionale oppervlakte- en cartoonweergave gegenereerd in een driedimensionaal moleculair visualisatieprogramma. (B) Een tweedimensionale interactiekaart gegenereerd in een moleculaire visualisatie- en tweedimensionale interactiediagramtool, die de Asp15-zoutbrug en aanvullende interacties op de bindingsplaats illustreert. Klik hier om een grotere versie van deze figuur te bekijken.
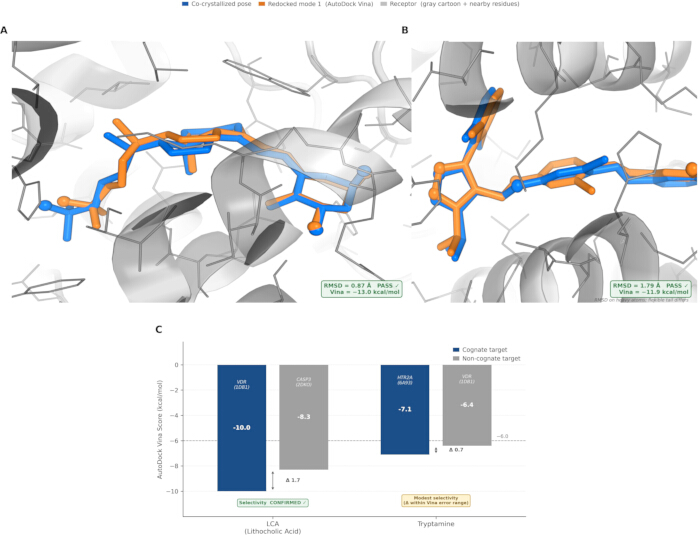
Figuur 10Validatie van docking-protocol. (A,B) Redocking van co-gekristalliseerde liganden in VDR/1DB1 (RMSD 0,87 Å) en FXR/3DCT (RMSD 1,79 Å); de kristallografische en geredockte poses zijn over elkaar heen gelegd, beide onder de acceptatiedrempel van 2,0 Å. (C) Cross-docking selectiviteit: cognate versus non-cognate Vina-scores voor lithocholzuur en tryptamine. Klik hier om een grotere versie van deze figuur te bekijken.
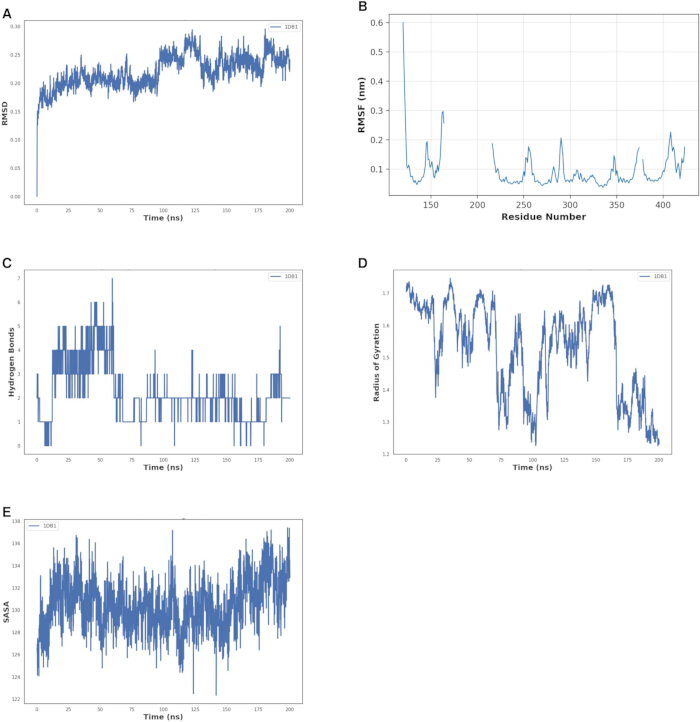
Figuur 1Moleculaire dynamica-trajectanalyse van het LCA-VDR/1DB1-complex over 20 ns. (A) RMSD-profiel. (B) RMSF-profiel. (C) Aantal waterstofbruggen. (D) Gyratie-straalprofiel. (E) SASA-profiel. Klik hier om een grotere versie van deze figuur te bekijken.
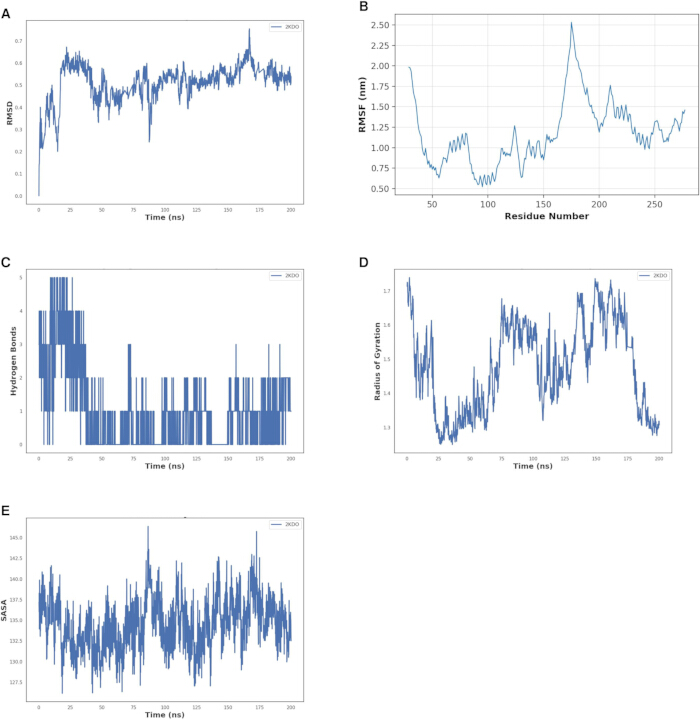
Figuur 12Moleculaire dynamica-trajectanalyse van het urolithine A-CASP3/2DKO-complex over 20 ns. (A) RMSD-profiel dat brede conformationele fluctuaties en een kortstondige gebeurtenis met een hoge afwijking nabij 165 ns laat zien. (B) RMSF-profiel dat een uitgesproken flexibiliteit op residuniveau vertoont nabij residu 175. (C) Aantal waterstofbruggen. (D) Gyratie-straalprofiel. (E) SASA-profiel. Klik hier om een grotere versie van deze figuur te bekijken.
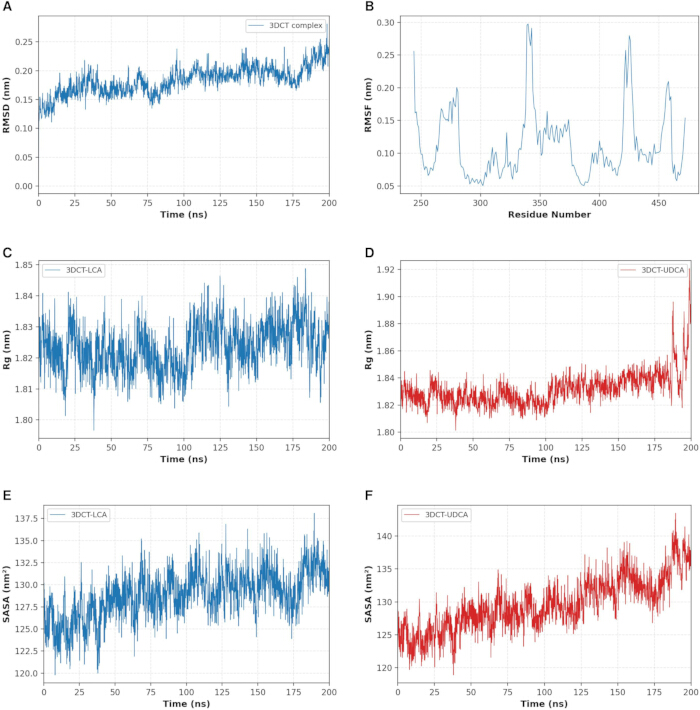
Figuur 13Moleculaire dynamica-trajectanalyse van de NR1H4/FXR (3DCT) galzuursystemen over 20 ns. (A) Backbone RMSD-profiel voor het 3DCT-complex. (B) RMSF-profiel van de backbone. (C) Gyratie-straalprofiel voor 3DCT-LCA. (D) Gyratie-straalprofiel voor 3DCT-UDCA. (E) SASA-profiel voor 3DCT-LCA. (F) SASA-profiel voor 3DCT-UDCA. Klik hier om een grotere versie van deze figuur te bekijken.
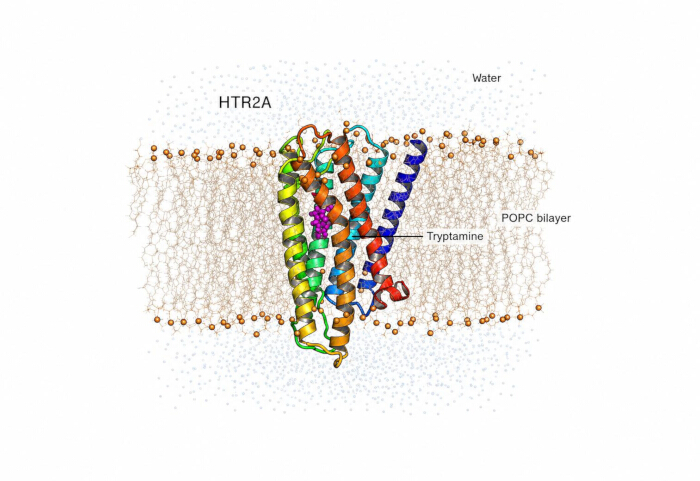
Figuur 14Het tryptamine-HTR2A-complex ingebed in een expliciete POPC-lipide dubbellaag. De receptor is weergegeven als een cartoon die door de dubbellaag loopt, POPC-lipiden als lijnen met gemarkeerde fosfaatkopgroepen, en tryptamine binnen de orthosterische pocket. Water is boven en onder het membraan weergegeven. Klik hier om een grotere versie van deze figuur te bekijken.
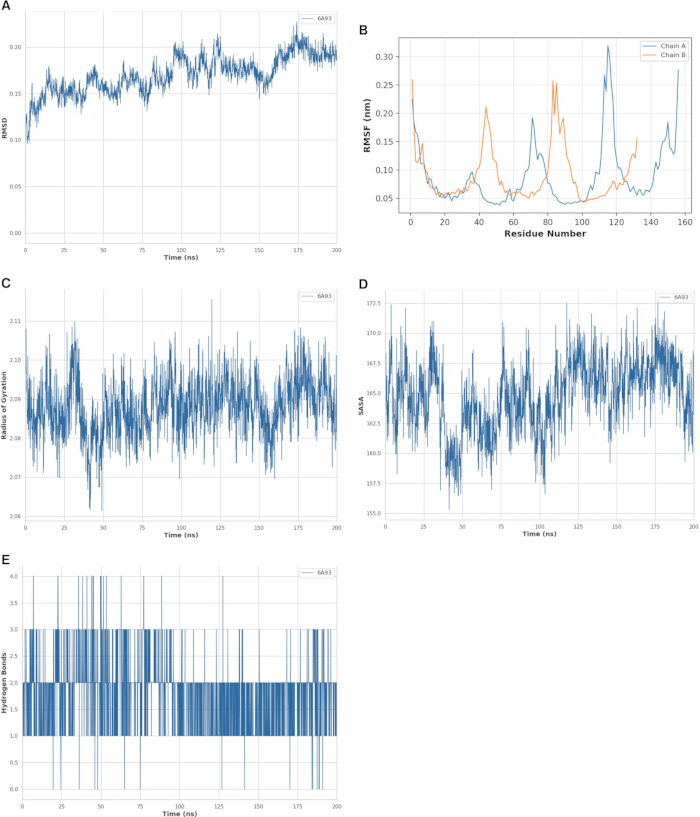
Figuur 15Moleculair-dynamische trajectanalyse van het tryptamine-HTR2A/6A93-complex gedurende 20 ns in een expliciete POPC-lipidenbilaag. (A) RMSD-profiel van de backbone. (B) RMSF-profiel per residu. (C) Gyratie-straalprofiel. (D) SASA-profiel. (E) Aantal waterstofbindingen tussen proteïne en ligand. Klik hier om een grotere versie van deze figuur te bekijken.
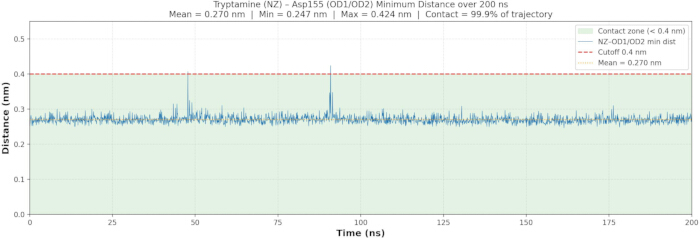
Figuur 16Persistentie van de tryptamine–Asp15 (D3.32) ionische interactie gedurende de 20 ns membraantrajectorie. De minimale afstand tussen de tryptamine-ammoniumstikstof en de carboxylzuurstofatomen van Asp15 is uitgezet tegen de tijd; de stippellijn markeert de drempelwaarde van 0,4 nm voor het contact van de zoutbrug. Het contact werd gedurende 9,9% van de simulatie gehandhaafd. Klik hier om een grotere versie van deze figuur te bekijken.
| Gensymbool | Metaboliet(en) van oorsprong | Functionele categorie | log2FC | FDR (aangepaste P-waarde) | Significantieniveau |
| GCG | Propionaat | Peptidehormoon-gerelateerd eiwit | −1.342 | 1,97e−7 | FDR (valse ontdekkingsgraad) <0.001 & |logFC > 1 |
| HDAC3 | Butyraat | Enzym | −1.234 | 2,4e−6 | FDR (false discovery rate) <0.001 & |logFC| > 1 |
| CASP3 | Urolithine A | Enzym | −1.198 | 6,6e−7 | FDR (false discovery rate / foutieve ontdekkingsgraad) <0.001 & |logFC| > 1 |
| GPR68 | Propionaat | Membraanreceptor | −1.137 | 4,35e−6 | FDR (false discovery rate) <0.001 & |logFC| > 1 |
| GNAQ | Propionaat | Intracellulair signaleringsproteïne | −1.122 | 1,05e−6 | FDR (false discovery rate / foutieve ontdekkingsratio) <0.001 & |logFC| > 1 |
| GPHN | Propionaat | Ander intracellulair eiwit | −1.109 | 1,13e−6 | FDR (false discovery rate / fout-ontdekkingssnelheid) <0.001 & |logFC| > 1 |
| TBXA2R | Propionaat | Membraanreceptor | −1.104 | 4,04e−7 | FDR (False Discovery Rate) <0.001 & |logFC| > 1 |
| HTR6 | Tryptamine | Membraanreceptor | −0.967 | 2,17e−5 | FDR (valse ontdekkingsgraad) <0.001 |
| VDR | Lithocholzuur | Kernreceptor | −0.942 | 5,73e−7 | FDR (False Discovery Rate) <0.001 |
| HTR2A | Tryptamine | Membraanreceptor | −0.937 | 4,9e−6 | FDR (vals-positiefpercentage) <0.001 |
| FFAR2 | Propionaat | Membraanreceptor | −0.889 | 1,4e−4 | FDR (False Discovery Rate) <0.001 |
| NR1H4 | Lithocholzuur / Ursodeoxycholzuur | Kernreceptor | −0.861 | 3,68e−6 | FDR (valse ontdekkingsvoet) <0.001 |
| HTR2B | Tryptamine | Membraanreceptor | −0.702 | 1,29e−4 | FDR (False Discovery Rate) <0.001 |
| MLN | Propionaat | Peptidhormoon-gerelateerd eiwit | −0.605 | 7,39e−5 | FDR (valse ontdekkingsgraad) <0.001 |
| KYAT1 | Indool-3-melkzuur / Indool-3-propionzuur | Enzym | −0.530 | 3,61e−4 | FDR (vals-positieve ratio) <0.001 |
| CASR | Propionaat | Membraanreceptor | −0.483 | 4,05e−4 | FDR (vals-positieve ratio) <0.001 |
| HTR1B | Tryptamine | Membraanreceptor | −0.455 | 3,18e−2 | FDR (False Discovery Rate / foutieve ontdekkingsratio) <0.05 |
Tabel 1: Voorspelde metaboliet-geassocieerde doelgenen die overlappen met differentieel tot expressie gekomen genen in de IBS-C rectale slijmvliesdataset. Alle vermelde overlappende genen waren downgereguleerd. Tabel 1 is afzonderlijk ingediend als een spreadsheet-tabel en vermeldt voor elk doelgen het(de) oorspronkelijke metaboliet(en), de functionele categorie, de bron van de doelvoorspelling (een chemische-eiwitinteractie-doelvoorspelling, een moleculaire docking-programma, of beide), een gecombineerde interactiescore van de chemische-eiwitinteractie-doelvoorspelling en, indien beschikbaar, de waarschijnlijkheid van het moleculaire docking-programma, het voorspellingsniveau, de log2 fold change en de FDR met het niveau van expressie-significantie. Bron: Genexpressiewaarden zijn verkregen uit de gen-gecollapseerde GSE36701 differentieel-expressietabel (laagste FDR-probe per gen). De bron van de doelvoorspelling en de betrouwheidswaarden zijn samengesteld uit de output van een chemische-eiwitinteractie-doelvoorspelling en een moleculaire docking-programma, met drempelwaarden van een gecombineerde interactiescore voor chemische-eiwitinteractie-doelvoorspelling ≥ 0,70 en een waarschijnlijkheid van het moleculaire docking-programma ≥ 0,70. Scores voor chemische-eiwitinteractie-doelvoorspellingen zijn gecombineerde scores op een schaal van 0–1; STP duidt de waarschijnlijkheid van een moleculaire docking-programma aan. Niveau 1 = strikte ondersteuning door chemische-eiwitinteractie-doelvoorspelling; Niveau 1+ = strikte ondersteuning door chemische-eiwitinteractie-doelvoorspelling, kruislingse ondersteund door een moleculaire docking-programma.
| Complex | Eiwit (PDB ID) | Ligand | Vina-score (kcal/mol) | Caviteitsgrootte (ų) | Rastercentrum X,Y,Z (A) | Zoekvenster (A) |
| LCA-VDR | VDR (1DB1) | Lithocholzuur | −10.0 | 2055 | 10, 19, 33 | 25 x 25 x 25 |
| LCA-NR1H4/FXR | NR1H4/FXR (3DCT) | Lithocholzuur | −9.9 | 3395 | 137, 31, 78 | 25 x 25 x 25 |
| UDCA-NR1H4/FXR | NR1H4/FXR (3DCT) | Ursodeoxycholzuur | −9.4 | 3395 | 137, 31, 78 | 25 x 25 x 25 |
| Urolithine A-CASP3 | CASP3 (2DKO) | Urolithine A | −7.1 | 233 | 37, 34, 32 | 25 x 25 x 25 |
| Tryptamine-HTR2A | HTR2A (6A93) | Tryptamine | −7.1 | 3238 | 12, −1, 61 | 25 x 25 x 25 |
Tabel 2: Resultaten van moleculaire docking: scores van de best gerangschikte moleculaire docking van metabolietliganden aan doeleiwitten en caviteitsparameters voor de vijf geprioriteerde eiwit-ligandcomplexen. De caviteitsgrootte is weergegeven in Å3. Bron: Docking_Validation/Results/Docking_Validation_Results.xlsx, blad 'Original_Docking_Scores'. Moleculaire docking van metabolietliganden aan doeleiwitten; exhaustiveness = 8, seed = 42 (vast), num_modes = 9 voor alle complexen; de best gerangschikte (modus 1) pose is gerapporteerd.
| Interactietype | Residu(s) | Afstand (A) | Opmerkingen |
| Conventionele waterstofbrug | Ser278 | 4.29 | LCA carboxylaatzuurstof |
| Hydrofoob / Pi-alkyl contact | Leu230, Val234, Trp286, Val30, His305, Tyr295, Leu23, His397 | - | |
| Van der Waals-contact | Met272, Leu313, Ile271, Ile268, Leu309, Phe42, Val418, Ala231, Ala303, Cys28, Ser275, Phe150 | - |
Tabel 3: Bindingmodi gegenereerd voor docking van lithocholzuur met VDR (PDB ID: 1DB1). Bron: moleculaire visualisatie en 2D-interactiediagramtool voor ligand-residu-interacties, zoals gerapporteerd in de resultaten van het manuscript (Moleculaire docking). '-' geeft aan dat er geen individuele afstandswaarde voor dat contact is gerapporteerd.
| Interactietype | Residu(s) | Afstand (A) | Opmerkingen |
| Waterstofbrug | His294 | - | |
| Waterstofbrug | Ile35 | - | |
| Pi-sigma-interactie | His294 | - | |
| Alkyl / Pi-Alkyl (hydrofoob) | Met290, Met328, Ala291, Leu287, Ile352, His47 | - | |
| Van der Waals-contact | Additionele pocketresiduen (niet afzonderlijk gespecificeerd in bron) | - | Ondersteunt de accommodatie van het steroïde skelet |
Tabel 4: Gegenereerde bindingsmodi voor docking van lithocholzuur met NR1H4/FXR (PDB ID: 3DCT).
Bron: moleculaire visualisatie en tool voor tweedimensionale interactiediagrammen 2D ligand-residu interactiediagrammen, zoals gerapporteerd in het manuscript Resultaten (Moleculaire docking). '-' geeft aan dat er geen individuele afstandswaarde voor dat contact is gerapporteerd.
| Interactietype | Residu(s) | Afstand (A) | Opmerkingen |
| Conventionele waterstofbinding | His47 | 3.66 | |
| Waterstofbinding | Gly32 | 3.46 | |
| Pi-anion-interactie | Val325 | 4.96 | |
| Koolstof-waterstofbinding | Trp469 | 4.51 | |
| Ongunstig donor-donorcontact | Arg395 | 3.89 | |
| Ongunstig donor-donorcontact | Gln396 | 3.40 |
Tabel 5: Bindingmodi gegenereerd voor docking van ursodeoxycholzuur met NR1H4/FXR (PDB ID: 3DCT). Bron: moleculaire visualisatie en tweedimensionale interactiediagram-tool 2D ligand-residu interactiediagrammen, zoals vermeld in de Resultaten (Moleculaire docking) van het manuscript. '-' geeft aan dat er voor dat contact geen individuele afstandswaarde is vermeld.
| Interactietype | Residu(s) | Afstand (A) | Opmerkingen |
| Conventionele waterstofbrug | Gln161 | 3.78 | |
| Conventionele waterstofbinding | Gln161 | 4.19 | tweede contact |
| Conventionele waterstofbrug | Ser120 | 3.95 | |
| Conventionele waterstofbinding | Arg207 | 3.05 | |
| Conventionele waterstofbrug | Arg207 | 3.77 | tweede contact |
| Pi-kation-interactie | Arg207 | - | |
| Pi-donor waterstofbinding | Cys163 | - | |
| Pi-alkyl / van der Waals-contact | Arg64, Ala162, His121, Ser205, Trp206 | - |
Tabel 6: Gegenereerde bindingsmodi voor urolithine A-docking met CASP3 (PDB ID: 2DKO). Bron: moleculaire visualisatie en tweedimensionale interactiediagramtool 2D ligand-residue interactiediagrammen, zoals gerapporteerd in de Resultaten van het manuscript (Moleculaire docking). '-' geeft aan dat er voor dat contact geen individuele afstandswaarde is gerapporteerd.
| Interactietype | Residu(s) | Afstand (A) | Opmerkingen |
| Elektrostatische zoutbrug | Asp15 (D3.32) | - | geprotoneerde amine van tryptamine |
| Waterstofbrug | Thr160 | - | |
| Waterstofbrug | Ser159 | - | |
| Aromatisch contact | Phe340, Trp336 | - | |
| Pi-alkyl-interactie | Val156, Ile163 | - | |
| Van der Waals-contact | Tyr370, Phe39, Ser242, Phe243, Phe32, Leu123 | - |
Tabel 7: Bindingsmodi gegenereerd voor tryptamine-docking met HTR2A (PDB ID: 6A93). Bron: moleculaire visualisatie en de tool voor tweedimensionale interactiediagrammen 2D ligand-residue interactiediagrammen, zoals gerapporteerd in de Resultaten van het manuscript (Moleculaire docking). '-' geeft aan dat er voor dat contact geen individuele afstandswaarde is gerapporteerd.
| (A) Redocking-validatie (positieve controles) | ||||||
| PDB ID | Eiwit | Co-kristal ligand | Vina-score (kcal/mol) | RMSD (A) | Drempelwaarde (A) | Resultaat |
| 1DB1 | VDR | VDX (vitamine D-analogaat) | −13.0 | 0.87 | 2.0 | GESLAAGD |
| 3DCT | FXR | WAY-362450 (064) | −1.9 | 1.79 | 2.0 | GESLAAGD |
| (B) Cross-docking-validatie (negatieve controles) | ||||||
| Ligand | Cognaat target (PDB) | Cognaat score (kcal/mol) | Niet-cognaat target (PDB) | Niet-cognaat score (kcal/mol) | Delta (kcal/mol) | Selectiviteit |
| Lithocholzuur | VDR (1DB1) | −10.0 | CASP3 (2DKO) | −8.3 | 1.7 | Bevestigd |
| Tryptamine | HTR2A (6A93) | −7.1 | VDR (1DB1) | −6.4 | 0.7 | Matig (binnen Vina-onzekerheid +/−0.5–1.0) |
Tabel 8: Resultaten van de validatie van het docking-protocol: redocking RMSD-waarden (positieve controles) en cross-docking scores (negatieve controles). Bron: Docking_Validation/Results/Docking_Validation_Results.xlsx en Docking_Validation/Logs/*.log (een moleculaire docking van metabolietliganden aan doelwitproteïnen, exhaustiveness = 8, seed = 42, 25 Å × 25 Å × 25 Å box). RMSD berekend op basis van matching van zware atomen en atoomnamen (zonder superpositie).
| Complex | RMSD (nm), gemiddelde ± SD (bereik) | Rg (nm), gemiddelde ± SD (bereik) | SASA (nm²), gemiddelde ± SD (bereik) | H-bindingen, gemiddelde + / – SD (bereik) | RMSF (nm), gemiddelde (max) |
| LCA-VDR/1DB1 | 0.230 + / – 0.025 (0.167–0.296) | 1.889 + / − 0.009 (1.863–1.919) | 130.4 + / − 2.3 (122.3–137.4) | 1.9 + / − 0.9 (0–7) | 0,093 (max 0,600 bij residu 120) |
| LCA-NR1H4/FXR/3DCT | 0.190 + / – 0.020 (0.135–0.281) | 1.824 + / − 0.008 (1.804–1.849) | 129.7 + / − 2.3 (121.9–138.1) | 3.8 + / − 0.7 (1–6) | 0,13 (max. 0,298) |
| UDCA-NR1H4/FXR/3DCT | 0.190 + / – 0.020 (0.135–0.281) | 1.834 + / − 0.013 (1.809–1.921) | 131.0 + / −3.4 (121.6–143.5) | 1.1 + / − 1.1 (0–5) | 0,13 (max. 0,298) |
| Urolithine A-CASP3/2DKO | 0.521 + / – 0.058 (0.244–0.755) | 1.892 + / − 0.024 (1.839–1.984) | 134.9 + / − 3.0 (126.4–146.4) | 0.6 + / − 0.7 (0–3) | 1,172 (max. 2,532 bij residu 175) |
| Tryptamine-HTR2A/6A93 (membraan) | 0.177 + / –0.017 (0.131–0.227) | 2.089 + / − 0.007 (2.070–2.116) | 165.1 + / − 2.7 (156.–172.7) | 1.7 + / − 0.7 (0–4) | 0,090 (max 0,319) |
Tabel 9: Samenvatting van het gedrag tijdens de moleculaire dynamicasimulatie van 200 ns voor de vijf geprioriteerde eiwit-ligandcomplexen, inclusief het in het membraan ingebedde tryptamine-HTR2A-systeem.Bron: bestanden van utilities voor trajactoranalyse van moleculaire dynamica (.xvg) — gmx rms, gmx gyrate, gmx sasa, gmx hbond, gmx rmsf — berekend over de laatste 150 ns (50–20 ns) van elke productierun van 20 ns, volgens protocolstap 8.8. RMSD/Rg gefit op de backbone; SASA-sonderadius 0,14 nm; H-binding donor-acceptor cutoff 0,35 nm / 30 °. LCA-3DCT en UDCA-3DCT delen één eiwitbackbone-trajactor (RMSD, RMSF) met ligand-specifieke Rg/SASA/H-bindingen.
| Tryptamine-HTR2A/6A93 (membraan) — kwantitatieve decompositie per residu | ||
| Residu | Totale ddG-bijdrage (kcal/mol), gemiddelde ± SD | Richting |
| Asp15 (D3.32) | −89.94 + / − 6.81 | Stabiliserend (dominant) |
| Tryptamine (ligand) | −13.01 + / − 6.22 | Stabiliseren |
| Tyr171 | 13.62 + / − 4.54 | Destabilisering |
| Val167 | 23.32 + / − 3.96 | Destabilisatie |
| Val156 | 20.03 + / − 3.81 | Destabiliserend |
| Thr160 | 4.86 + / − 3.64 | Destabiliserend |
| Ser159 | 24.16 + / − 3.48 | Destabilisering |
| Ser86 | 24.48 + / − 3.65 | Destabilisering |
| Phe87 | 35.18 + / − 4.04 | Destabilisering |
| Phe13 | 32.80 + / −3.70 | Destabilisering |
| Phe140 | 30.63 + / − 3.84 | Destabilisatie |
| Phe141 | 35.25 + / − 3.55 | Destabilisering |
| Ile163 | 27.64 + / − 3.71 | Destabilisering |
| Trp137 | 53.77 + / − 4.32 | Destabiliserend (grootste ongunstige) |
| De overige vier complexen — residuen geïdentificeerd in per-residu decompositie (kwalitatief) | ||
| Complex | Residu | Richting |
| LCA-VDR/1DB1 | Ligand (LCA) | Gunstig |
| LCA-VDR/1DB1 | Gln317 | Gunstig |
| LCA-VDR/1DB1 | Trp286 | Ongunstig |
| LCA-NR1H4/FXR/3DCT | Arg31 | Gunstig (dominant) |
| UDCA-NR1H4/FXR/3DCT | Glu326 | Gemengd/gedistribueerd netwerk |
| UDCA-NR1H4/FXR/3DCT | Asp394 | Gemengd/gedistribueerd netwerk |
| UDCA-NR1H4/FXR/3DCT | Arg395 | Gemengd/gedistribueerd netwerk |
| UDCA-NR1H4/FXR/3DCT | Arg41 | Gemengd/gedistribueerd netwerk |
| UDCA-NR1H4/FXR/3DCT | Asp470 | Gemengd/gedistribueerd netwerk |
| Urolithine A-CASP3/2DKO | Arg64 | Sterk gunstig (polair/elektrostatisch) |
| Urolithine A-CASP3/2DKO | Arg207 | Sterk gunstig (polair/elektrostatisch) |
Tabel 10: Per-residue MM-PBSA decompositie KORTE SAMENVATTING: stabiliserende en destabiliserende residuen (absolute bijdrage ≥ 0,5 kcal mol⁻1) voor elk van de vijf geprioriteerde eiwit-ligandcomplexen, inclusief het membraaneingebedde tryptamine-HTR2A-systeem. Bron: Membrane Simulation/03_MMPBSA/results/FINAL_DECOMP_MMPBSA.dat (molecular mechanics/continuum-solvent binding-energy calculation tool Generalized Born (GB) per-residue decompositie, 'Complex: Total Energy Decomposition'). Residunummers omgezet van de interne nummering van het via CHARMM-GUI gebouwde systeem (offset +68) naar de oorspronkelijke 6A93 PDB-nummering die elders in dit manuscript wordt gebruikt.
Bron: Vorige_MD Simulation data/1DB1,2KD0, LCA & UDCA_3DCT}/mmpbsa_*/Decomposition_NORMAL_GB_Complex_TDC*.svg en manuscript Resultaten (MM-PBSA bindingsvrije energie en per-residu decompositie). Voor deze vier complexen zijn geen numerieke per-residu .dat/.csv outputs aanwezig in de projectmap (alleen gerenderde SVG-plots met vectorpad-tekst die niet machine-extraheerbaar is); alleen de residu-identiteit en de gunstige/ongunstige richting, zoals vermeld in de tekst van het manuscript, worden gerapporteerd. Exacte kcal/mol bijdragen voor deze vier complexen zijn niet beschikbaar in de bronrepository.
Discussie
Deze verkennende computationele studie demonstreert een geïntegreerde, reproduceerbare workflow voor het prioriteren van gastheergeneen en eiwit-ligandcomplexen geassocieerd met microbiële metabolieten, hier toegepast op een publieke transcriptomische dataset van het rectale slijmvlies bij IBS-C. Met behulp van deze workflow overlapte een subset van voorspelde genen geassocieerd met microbiële metabolieten met consistent gedownreguleerde genen in de dataset, die clusterden binnen GPCR-, serotonerge, calcium-signalering, neuroactieve ligand-receptor en nucleaire receptor-geassocieerde pathways; systemen die in toenemende mate worden geïmpliceerd in de communicatie tussen microbiota en gastheer48,49. Deze bevindingen moeten strikt worden geïnterpreteerd als hypothese-genererend: de analyse meet geen concentraties van microbiële metabolieten, abundantie van receptorproteïnen, ligandbinding, receptoractivatie, downstream signalering, motiliteit, secretie, pijnreacties of klinische uitkomsten. De sterkste ondersteunbare conclusie is dat de geïdentificeerde genen en pathways kandidaten zijn voor experimentele validatie in plaats van bevestigde ziektemechanismen.
De cruciale betekenis van dit protocol, in vergelijking met eerder werk waarbij individuele metaboliet-receptorparen geïsoleerd werden onderzocht, ligt in de integratie van targetvoorspelling, publieke transcriptomica, netwerkanalyse, docking met validatiecontroles, moleculaire dynamica en MM-PBSA in één enkele sequentiële prioriteringspipeline. Elke fase vernauwt en contextualiseert de set kandidaten die in de voorgaande fase is gegenereerd, en deze sequentiële filtering maakt de uiteindelijke kandidatenlijst experimenteel hanteerbaar. De GNAQ-gecentreerde GPCR-module en de module geassocieerd met de serotonine-receptor die hier zijn geïdentificeerd, zijn biologisch plausibel gezien de rol van Gq-signalering bij de activatie van fosfolipase C, de productie van inositol 1,4,5-trifosfaat, calciummobilisatie, secretie en enteroendocrine functie, evenals de gevestigde rollen van signalering door kortketenvetzuren en tryptofaan-derivaten bij mucosale homeostase en van serotonerge signalering bij gastro-intestinale motiliteit, secretie, viscerale sensitiviteit en communicatie tussen darm en hersenen10,18,50,51.
Een belangrijk methodologisch kenmerk van deze studie is de behandeling van de membraan-ingebedde receptor HTR2A. Omdat een simulatie in de oplosbare fase de lipide-omgeving die het conformationele gedrag van een G-proteïnegekoppelde receptor bepaalt niet kan reproduceren, werd het tryptamine-HTR2A-complex gesimuleerd in een expliciete POPC-dubbellaag. In deze membraanomgeving bleef de receptor structureel stabiel gedurende de volledige trajectorie van 200 ns, en de zoutbrug tussen het tryptamine-ammonium en Asp155 (D3.32) bleef gedurende vrijwel de gehele simulatie behouden. Het feit dat drie onafhankelijke bewijslijnen — de docking-pose, de aanhoudende contactafstand gedurende de trajectorie en de dominante MM-PBSA-bijdrage per residu — convergeren naar dezelfde geconserveerde D3.32-interactie, biedt interne consistentie voor de voorspelde bindingswijze van tryptamine, die de canonieke bindingsgeometrie van aminerge liganden bij serotonine-receptoren recapituleert.
Er zijn bepaalde methodologische kwesties om rekening mee te houden bij het reproduceren van deze workflow. Fouten in de canonieke structuur of verbindingen die zijn gemarkeerd als Pan-assay interference compounds ((PAINS)) planten zich voort via target-predictie en docking, waardoor nauwkeurige selectie van metabolieten en chemoinformatische curatie vereist zijn. Minimaliseer door ruis gedreven target-sets door de betrouwbaarheidscriteria consistent toe te passen (target-predictie van chemische-eiwitinteracties: ≥0,700; moleculair docking-programma: ≥0,70; constructie van eiwit-eiwitinteractienetwerken en pathway-enrichment: ≥0,700). Voorspelde targets moeten worden gegroepeerd per functionele categorie om te voorkomen dat alle met metabolieten geassocieerde genen onterecht als receptoren worden gekarakteriseerd. Precieze preprocessing van PDB-structuren, energieminisatie van liganden en grid-plaatsing rondom bekende bindingsresiduen zijn essentiële aspecten van docking, en de hier geïntroduceerde redocking- en cross-docking-controles bieden een objectieve maat voor de correctheid van de docking-methodologie. De reproduceerbaarheidskader in moleculaire dynamica wordt bepaald door een combinatie van force-field-parametrisering, juiste solvatatie of membraanopbouw, gefaseerde equilibratie en adequate production sampling.
Typische aanpassingen en stappen voor probleemoplossing omvatten het versoepelen van drempelwaarden als de doelvoorspelling geen hits oplevert, het controleren van de directionele consistentie op probeniveau voor genen met meerdere probes, en het interpreteren van geïsoleerde nodes bij de constructie van proteïne-proteïne-interactienetwerken en pathway-enrichment als drempelwaarde-afhankelijk in plaats van biologisch irrelevant. Voor membraanreceptoren moet expliciete lipide-dubbellaagsimulatie worden gebruikt in plaats van simulatie in waterig milieu, zoals geïllustreerd door de hier beschreven HTR2A-methode. Wanneer een energie-decompositie per residu noodzakelijk is, moet de berekening worden uitgevoerd met een engine die decompositie ondersteunt, en de gerapporteerde residunummering moet worden afgestemd op de oorspronkelijke receptor-nummering om ambiguïteit te voorkomen. Wij stellen voor dat resultaten van pathway-enrichment bij voorkeur worden beschouwd als een organisatorische context voor de kandidatenlijst, in plaats van als validatie op pathway-niveau. Mechanisch gezien zal enrichment van GPCR-, serotonerge of calcium-signalerings termen optreden zodra de genenlijst meerdere serotonine-receptorgenen bevat, ongeacht de co-regulatie op proteïneniveau. RMSD-, Rg- en RMSF-waarden voor het membraangebonden HTR2A-systeem moeten worden geïnterpreteerd met inachtneming van de lipide-dubbellaag: een afname van Rg in de latere trajectory kan een door de dubbellaag gedreven conformationele adaptatie van het transmembraanbundel weerspiegelen in plaats van globale ontvouwing, en persistente ligand-proteïne waterstofbruggen moeten worden geïnterpreteerd in samenhang met de algemene RMSD-stabiliteit.
De beperkingen van deze studie zijn aanzienlijk en beperken de interpretatie. Het onderzoek was gebaseerd op één relatief kleine publieke dataset, en een zoekopdracht in de belangrijkste publieke transcriptomische repositories (web-gebaseerde tool voor differentiële genexpressie-analyse en ArrayExpress) identificeerde ten tijde van de analyse geen onafhankelijke transcriptoomdataset van het rectale slijmvlies bij IBS-C met een vergelijkbaar ontwerp en platform die als replicatiecohort kon dienen. Het ontbreken van onafhankelijke transcriptomische replicatie is een belangrijke beperking, en geen enkele uitspraak in dit manuscript mag worden geïnterpreteerd als externe validatie van de bevindingen uit de enkele dataset. De dataset vertoont een bijna universele differentiële expressie (ongeveer 94,5% van de genen is significant, waarvan de overgrote meerderheid is downgereguleerd), een eigenschap waardoor conventionele verrijkingsstatistieken niet informatief zijn en conclusies over de specificiteit van de downregulatie van target-genen ten opzichte van de genomische achtergrond worden belemmerd; de overlap wordt daarom gerapporteerd als een beschrijvend directioneel patroon in plaats van statistische verrijking. Bulk transcriptomics van het slijmvlies kan werkelijke genregulatie niet onderscheiden van veranderingen in de celcompositie. mRNA-expressie bepaalt de eiwitovervloed of functionele respons niet. Databases voor targetpredictie lijden aan annotatiebias, en de resultaten van docking, MD en MM-PBSA zijn afhankelijk van de keuze van het force field, ligandparametrisering, startpositie, simulatietijd en de adequaatheid van de sampling. Exacte minor/build-identificatoren voor sommige webserver- en packagecomponenten, inclusief de CHARMM-compatibele ligandparametriseringsdienst, CHARMM-GUI en de statistische computeromgeving
Package-builds en subversies van de tool voor moleculaire mechanica/continuüm-solvent bindingsenergieberekeningen konden niet volledig worden hersteld uit het gearchiveerde projectrecord en moeten worden gerapporteerd als beschikbaar in de aparte Tabel van Materialen. De MM-PBSA-waarden zijn relatieve schattingen, bevatten geen expliciete configurationele entropieterm en mogen niet worden geïnterpreteerd als experimentele affiniteiten. De studie bevat geen metabolomische gegevens en kan niet bepalen of de beschikbaarheid van liganden is gewijzigd bij IBS-C, of dat de waargenomen expressiewijzigingen oorzaken, gevolgen, compensatoire reacties of irrelevante correlaties zijn.
Toekomstige toepassingen van deze methode zouden onafhankelijke transcriptomische replicatie, Quantitative polymerase chain reaction (qPCR) en validatie op proteïneniveau, celtype-lokalisatie via single-cell of spatiale transcriptomics, metabolomische profilering van de relevante metabolietklassen en functionele ligand-respons-assays in patiënt-afgeleide colonoiden, mucosale explantaten of vergelijkbare modellen moeten omvatten. Vergelijkingen met cohorten van diarree-predominante IBS, gemengde IBS, inflammatoire darmziekten en niet-IBS obstipatie1,2 zouden helpen om de ziektespecificiteit vast te stellen. Voor het structurele onderdeel zouden het repliceren van MD-trajecten, het uitvoeren van sensitiviteitsanalyses met alternatieve startposities en het volledig documenteren van de depositie van de topologie, trajecten en MM-PBSA input- en outputbestanden de reproduceerbaarheid verder versterken. Experimentele ligand-respons-assays blijven noodzakelijk om te bepalen of de geprioriteerde complexen functioneel relevant zijn; de huidige resultaten ondersteunen geen klinische of therapeutische claims.
Openbaarmakingen
De auteur verklaart dat er geen belangenverstrengeling is.
Dankbetuigingen
Er is geen externe financiering ontvangen voor deze studie. De openbare beschikbaarheid van de GSE36701-dataset en de bronnen STITCH, SwissTargetPrediction, SwissADME, STRING, RCSB Protein Data Bank, Gene Expression Omnibus, CHARMM-GUI en Orientations of Proteins in Membranes (OPM), alsook de software AutoDock Vina, GROMACS, CHARMM36m, CGenFF, gmx_MMPBSA, Open Babel, PyMOL en Discovery Studio Visualizer, wordt gratefully erkend.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| AutoDock Vina | Scripps Research / open source | v1.2.7; https://vina.scripps.edu/ | Moleculaire docking van metabolietliganden aan doelwitproteïnen. |
| CGenFF/ParamChem | SilcsBio / University of Maryland | v4.6; https://cgenff.com/ | Ligand force-field parametrisering voor moleculaire dynamica. |
| CHARMM36m force field | CHARMM developers / open source | CHARMM36m; https://www.charmm.org/charmm/resources/charmm-force-fields/ | Proteïne force field gebruikt voor moleculaire dynamica simulaties. |
| CHARMM-GUI Membrane Builder | CHARMM-GUI / Lehigh University | Webserver; exacte release niet herleidbaar; https://www.charmm-gui.org/?doc=input/membrane | Constructie en equilibratie-opstelling van het expliciete POPC-membraansysteem. |
| Discovery Studio Visualizer | BIOVIA (Dassault Systèmes) | 2021; https://discover.3ds.com/discovery-studio-visualizer-download | Tweidimensionale analyse van ligand-residu interacties. |
| GEO2R | NCBI Gene Expression Omnibus | Webtool; geraadpleegd jan-mei 2026; https://www.ncbi.nlm.nih.gov/geo/geo2r/ | Differentieel-expressieanalyse van GSE36701. |
| GeneCards | Weizmann Institute of Science | Webdatabase; geraadpleegd jan-mei 2026; https://www.genecards.org/ | Verificatie van gensymbool en geninformatie tijdens target-standaardisatie. |
| gmx_MMPBSA | Open source (Valdés-Tresanco et al.) | 1.5.x; https://valdes-tresanco-ms.github.io/gmx_MMPBSA/ | MM-PBSA binding vrije-energie schatting en per-residu decompositie. |
| GROMACS | GROMACS development team / open source | 2024.2; https://www.gromacs.org/ | Simulatiemachine voor moleculaire dynamica. |
| GSE36701 transcriptoom-dataset | NCBI Gene Expression Omnibus | GSE36701; https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE36701 | Publieke IBS-C rectumslijmvlies expressie-dataset. |
| Open Babel | Open source | 3.2.0; https://openbabel.org/ | Conversie van chemische bestandsformaten, genereren van driedimensionale liganden en ligand-preparatie. |
| OPM database | University of Michigan | Webdatabase; geraadpleegd jan-mei 2026; https://opm.phar.umich.edu/ | Oriëntatie van Proteïnen in Membranen coördinaten gebruikt om HTR2A uit te lijnen. |
| ParmEd | ParmEd developers / open source | 4.x; https://parmed.github.io/ParmEd/html/index.html | Herverdeling van waterstofmassa's en verwerking van molecuulsimulatie-topologie. |
| PyMOL | Schrödinger / open source | 2.x; https://www.pymol.org/ | Driedimensionale structurele visualisatie en receptor-ligand figuren. |
| RCSB Protein Data Bank | RCSB PDB | Webdatabase; geraadpleegd jan-mei 2026; https://www.rcsb.org/ | Bron van experimentele proteïnestructuren en PDB-coördinaten. |
| STITCH | STITCH consortium (EMBL) | v5.0; https://stitch.embl.de/ | Voorspelling van chemisch-proteïne interactie-doelwitten. |
| STRING | STRING Consortium / ELIXIR | v12.0; https://version-12-0.string-db.org/ | Constructie van proteïne-proteïne interactienetwerken en pathway-enrichment. |
| SwissADME | SIB Swiss Institute of Bioinformatics / University of Lausanne | Webtool; geraadpleegd jan-mei 2026; https://www.swissadme.ch/ | Chemo-informatische descriptoren, farmacokinetische voorspellingen en PAINS-beoordeling. |
| SwissTargetPrediction | SIB Swiss Institute of Bioinformatics / University of Lausanne | Webtool; geraadpleegd jan-mei 2026; https://www.swisstargetprediction.ch/ | Ligand-gebaseerde voorspelling van menselijke proteïne-doelwitten. |
| UniProt ID Mapping | UniProt Consortium | Webservice; geraadpleegd jan-mei 2026; https://www.uniprot.org/id-mapping | Mapping van proteïne-identificatoren naar gestandaardiseerde, HGNC-goedgekeurde gensymbolen. |
| NVIDIA RTX 3080 | NVIDIA Corporation | RTX 3080; ≥8 GB VRAM; CUDA/driver versie niet gespecificeerd in manuscript | CUDA-compatibele grafische processoreenheid gebruikt voor moleculaire dynamica simulaties. |
| CUDA-compatibele GPU | NVIDIA Corporation | CUDA toolkit versie niet gespecificeerd in manuscript; ≥8 GB VRAM | CUDA-compatibele GPU met ≥8 GB VRAM; het werkstation vereiste tevens ≥32 GB RAM en een 6-core CPU. |
| Ubuntu Linux | Canonical Ltd. / open source | 22.04 LTS | 64-bits Linux besturingssysteem. |
| Python 3.9 | Python Software Foundation | 3.9 | Algemene programmeeromgeving gebruikt voor workflow-scripting en analyse. |
| Gene Expression Omnibus (GEO) | NCBI / U.S. National Library of Medicine | Publieke webrepository; geen softwareversie gespecificeerd in manuscript | Publieke repository voor functionele genomica-gegevens. |
| AutoDockTools/MGLTools | Molecular Graphics Laboratory, Scripps Research | 1.5.7 | Toolkit voor molecuulstructuur en docking-input preparatie. |
| GROMACS analyse tools | GROMACS development team / open source | 2024.2 | Hulpmiddelen voor analyse van moleculaire dynamica trajecten. |
| CHARMM-GUI zes-stappen protocol | CHARMM-GUI / Lehigh University | Webprotocol; exacte release niet herleidbaar | Web-gebaseerde meerstaps workflow voor preparatie en equilibratie van moleculaire systemen. |
| cgenff_charmm2gmx_py3.py | Open-source conversiescript; bron niet gespecificeerd in manuscript | Versie niet gespecificeerd in manuscript | Script voor conversie van force-field topologie. |
| Python | Python Software Foundation | 3.9 | Algemene programmeeromgeving. |
| SciPy | SciPy community / open source | Versie niet gespecificeerd in manuscript | Bibliotheek voor wetenschappelijke berekeningen. |
| scipy.stats.fisher_exact | SciPy community / open source | SciPy versie niet gespecificeerd in manuscript | Implementatie van de exacte test van Fisher’s. |
| R | R Foundation for Statistical Computing | 4.3.x | Statistische rekenomgeving. |
| Bioconductor | Bioconductor project / open source | 3.18 | Bio-informatica softwareframework. |
| limma | Bioconductor project / open source | Versie niet gespecificeerd in manuscript | Pakket voor analyse van differentiële genexpressie. |
| Benjamini–Hochberg procedure | Statistische methode | Niet van toepassing (statistische procedure) | Methode voor aanpassing van de false-discovery-rate. |
| NVIDIA RTX 3080 | NVIDIA Corporation | RTX 3080; ≥8 GB VRAM; CUDA/driver versie niet gespecificeerd in manuscript | Grafische processoreenheid met ten minste 8 GB videogeheugen. |
| CUDA-compatibele GPU | NVIDIA Corporation | CUDA toolkit versie niet gespecificeerd in manuscript; ≥8 GB VRAM | Grafische processoreenheid die algemene parallelle berekeningen ondersteunt. |
| Ubuntu Linux 22.04 LTS | Canonical Ltd. / open source | 22.04 LTS | 64-bits Linux besturingssysteem. |
| TIP3P | CHARMM force-field developers / open source | TIP3P; geen softwareversie van toepassing | Expliciet driepuntig watermodel. |
| MM/PBSA | gmx_MMPBSA developers / open source | gmx_MMPBSA 1.5.x | Moleculaire mechanica/Poisson–Boltzmann surface-area methode voor bindingsenergie. |
Referenties
- Ford AC, Lacy BE, Talley NJ. Irritable bowel syndrome. N Engl J Med. 2017;376(26):2566–2578.
- Sperber AD, et al. Worldwide prevalence and burden of functional gastrointestinal disorders: results of the Rome Foundation Global Study. Gastroenterology. 2021;160(1):99–114.e3.
- Chang L, et al. AGA clinical practice guideline on the pharmacological management of irritable bowel syndrome with constipation. Gastroenterology. 2022;163(1):118–136.
- Lacy BE, et al. ACG clinical guideline: management of irritable bowel syndrome. Am J Gastroenterol. 2021;116(1):17–44.
- Lavelle A, Sokol H. Gut microbiota-derived metabolites as key actors in inflammatory bowel disease. Nat Rev Gastroenterol Hepatol. 2020;17(4):223–237.
- Morrison DJ, Preston T. Formation of short-chain fatty acids by the gut microbiota and their impact on human metabolism. Gut Microbes. 2016;7(3):189–200.
- Ridlon JM, et al. Consequences of bile salt biotransformations by intestinal bacteria. Gut Microbes. 2016;7(1):22–39.
- Roager HM, Licht TR. Microbial tryptophan catabolites in health and disease. Nat Commun. 2018;9(1):3294. doi:10.1038/s41467-018-05470-4.
- Krautkramer KA, Fan J, Bäckhed F. Gut microbial metabolites as multi-kingdom intermediates. Nat Rev Microbiol. 2021;19(2):77–94.
- Pittayanon R, et al. Gut microbiota in patients with irritable bowel syndrome: a systematic review. Gastroenterology. 2019;157(1):97–108.
- Hopkins AL. Network pharmacology: the next paradigm in drug discovery. Nat Chem Biol. 2008;4(11):682–690.
- O’Boyle NM, et al. Open Babel: an open chemical toolbox. J Cheminform. 2011;3:33. doi:10.1186/1758-2946-3-33.
- Daina A, Michielin O, Zoete V. SwissADME: a free web tool to evaluate pharmacokinetics, drug-likeness, and medicinal chemistry friendliness of small molecules. Sci Rep. 2017;7:42717. doi:10.1038/srep42717.
- Szklarczyk D, et al. STITCH 5: augmenting protein–chemical interaction networks with tissue and affinity data. Nucleic Acids Res. 2016;44(D1):D380–D384.
- Daina A, Michielin O, Zoete V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 2019;47(W1):W357–W364.
- Barrett T, et al. NCBI GEO: archive for functional genomics data sets—update. Nucleic Acids Res. 2013;41(D1):D991–D995.
- Edgar R, Domrachev M, Lash AE. Gene Expression Omnibus: NCBI gene expression and hybridization array data repository. Nucleic Acids Res. 2002;30(1):207–210.
- Swan C, et al. Identifying and testing candidate genetic polymorphisms in irritable bowel syndrome: association with TNFSF15 and TNFα. Gut. 2013;62(7):985–994.
- Ritchie ME, et al. Limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47. doi:10.1093/nar/gkv007.
- Szklarczyk D, et al. The STRING database in 2023: protein–protein association networks and functional enrichment analyses for any sequenced genome of interest. Nucleic Acids Res. 2023;51(D1):D638–D646.
- Kanehisa M, Goto S. KEGG: Kyoto Encyclopedia of Genes and Genomes. Nucleic Acids Res. 2000;28(1):27–30.
- Gillespie M, et al. The Reactome pathway knowledgebase 2022. Nucleic Acids Res. 2022;50(D1):D687–D692.
- Ashburner M, et al. Gene Ontology: tool for the unification of biology. Nat Genet. 2000;25(1):25–29.
- Gene Ontology Consortium, et al. The Gene Ontology knowledgebase in 2023. Genetics. 2023;224(1):iyad031. doi:10.1093/genetics/iyad031.
- Berman HM, et al. The Protein Data Bank. Nucleic Acids Res. 2000;28(1):235–242.
- Eberhardt J, Santos-Martins D, Tillack AF, Forli S. AutoDock Vina 1.2.0: new docking methods, expanded force field, and Python bindings. J Chem Inf Model. 2021;61(8):3891–3898.
- Trott O, Olson AJ. AutoDock Vina: improving the speed and accuracy of docking. J Comput Chem. 2010;31(2):455–461.
- Vanommeslaeghe K, et al. CHARMM general force field: a force field for drug-like molecules compatible with the CHARMM all-atom additive biological force fields. J Comput Chem. 2010;31(4):671–690.
- Huang J, MacKerell AD Jr. CHARMM36 all-atom additive protein force field: validation based on comparison to NMR data. J Comput Chem. 2013;34(25):2135–2145.
- Jorgensen WL, et al. Comparison of simple potential functions for simulating liquid water. J Chem Phys. 1983;79(2):926–935.
- Abraham MJ, et al. GROMACS: high-performance molecular simulations through multi-level parallelism from laptops to supercomputers. SoftwareX. 2015;1–2:19–25.
- Jo S, Kim T, Iyer VG, Im W. CHARMM-GUI: a web-based graphical user interface for CHARMM. J Comput Chem. 2008;29(11):1859–1865.
- Wu EL, et al. CHARMM-GUI Membrane Builder toward realistic biological membrane simulations. J Comput Chem. 2014;35(27):1997–2004.
- Lomize MA, et al. OPM database and PPM web server: resources for positioning proteins in membranes. Nucleic Acids Res. 2012;40(D1):D370–D376.
- Darden T, York D, Pedersen L. Particle mesh Ewald: an N log(N) method for Ewald sums in large systems. J Chem Phys. 1993;98(12):10089–10092.
- Hess B, Bekker H, Berendsen HJC, Fraaije JGEM. LINCS: a linear constraint solver for molecular simulations. J Comput Chem. 1997;18(12):1463–1472.
- Valdés-Tresanco MS, Valdés-Tresanco ME, Valiente PA, Moreno E. gmx_MMPBSA: a new tool to perform end-state free-energy calculations with GROMACS. J Chem Theory Comput. 2021;17(10):6281–6291.
- Fiorucci S, Distrutti E. Bile acid-activated receptors, intestinal microbiota, and the treatment of metabolic disorders. Trends Mol Med. 2015;21(11):702–714.
- Wahlström A, Sayin SI, Marschall HU, Bäckhed F. Intestinal crosstalk between bile acids and microbiota and its impact on host metabolism. Cell Metab. 2016;24(1):41–50.
- Gershon MD, Tack J. The serotonin signaling system: from basic understanding to drug development for functional gastrointestinal disorders. Gastroenterology. 2007;132(1):397–414.
- Kim K, et al. Structure of a hallucinogen-activated Gq-coupled 5-HT2A serotonin receptor. Cell. 2020;182(6):1574–1588.e19.
- Ballesteros JA, Weinstein H. Integrated methods for the construction of three-dimensional models and computational probing of structure–function relations in G protein-coupled receptors. In: Sealfon SC, editor. Receptor Molecular Biology. Methods in Neurosciences. Vol. 25. San Diego: Academic Press; 1995. p. 366–428.
- McCorvy JD, Roth BL. Structure and function of serotonin G protein-coupled receptors. Pharmacol Ther. 2015;150:129–142.
- Klauda JB, et al. Update of the CHARMM all-atom additive force field for lipids: validation on six lipid types. J Phys Chem B. 2010;114(23):7830–7843.
- Lee J, et al. CHARMM-GUI input generator for NAMD, GROMACS, AMBER, OpenMM, and CHARMM/OpenMM simulations using the CHARMM36 additive force field. J Chem Theory Comput. 2016;12(1):405–413.
- Genheden S, Ryde U. The MM/PBSA and MM/GBSA methods to estimate ligand-binding affinities. Expert Opin Drug Discov. 2015;10(5):449–461.
- Kollman PA, et al. Calculating structures and free energies of complex molecules: combining molecular mechanics and continuum models. Acc Chem Res. 2000;33(12):889–897.
- Cryan JF, et al. The microbiota–gut–brain axis. Physiol Rev. 2019;99(4):1877–2013.
- Koh A, De Vadder F, Kovatcheva-Datchary P, Bäckhed F. From dietary fiber to host physiology: short-chain fatty acids as key bacterial metabolites. Cell. 2016;165(6):1332–1345.
- Tan J, et al. The role of short-chain fatty acids in health and disease. Adv Immunol. 2014;121:91–119.
- Agus A, Planchais J, Sokol H. Gut microbiota regulation of tryptophan metabolism in health and disease. Cell Host Microbe. 2018;23(6):716–724.