Dit protocol beschrijft de flowcytometrische detectie van intracellulaire eiwitten in humane K562 erythroleukemiecellen met behulp van niet-geconjugeerde primaire polyklonale antilichamen. De specificiteit van het antilichaam wordt aangetoond door dosisafhankelijke inhibitie van de kleuring via peptidecompetitie.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Flowcytometrische detectie van intracellulaire eiwitten in K562 menselijke erythroleukemiecellen met behulp van niet-geconjugeerde primaire antilichamen
In dit artikel
Samenvatting
Samenvatting
Flowcytometrie is een krachtige techniek voor de kwantitatieve analyse van eiwitexpressie op enkelcelniveau. Dit protocol beschrijft een workflow voor het detecteren van intracellulaire eiwitten in menselijke K562 erythroleukemiecellen met behulp van niet-geconjugeerde primaire polyklonale antilichamen en fluorofoor-geconjugeerde secundaire antilichamen. Cellen worden opeenvolgend gefixeerd, gepermeabiliseerd en geblokkeerd voorafgaand aan de antilichaamkleuring. Door de volgorde van de antilichaaminkubatie ten opzichte van de fixatie en permeabilisatie te variëren, maakt het protocol de beoordeling mogelijk van eiwitten met een oppervlakte- of intracellulaire lokalisatie via afzonderlijke kleuringsworkflows. Nucleaire kleuring van splicingfactor 3a subunit 1 (SF3A1) wordt gedemonstreerd met een affiniteitsgezuiverd konijn anti-SF3A1 polyklonaal antilichaam, en de specificiteit van het antilichaam wordt geëvalueerd door dosisafhankelijke remming van de kleuring met het corresponderende antigene peptide. Daarnaast worden kleuringscondities gebruikt om de reactiviteit van een antilichaam dat zich richt op het intracellulaire domein van de erytropoëtine-receptor te beoordelen. Deze gestandaardiseerde workflow breidt het gebruik van niet-geconjugeerde primaire antilichamen in flowcytometrie uit en biedt een praktische benadering voor het evalueren van eiwitexpressie en lokalisatie, evenals de antilichaamspecificiteit in menselijke K562 erythroleukemiecellen.
Inleiding
Flowcytometrie is een krachtig en veelgebruikt analytisch instrument waarmee kwantitatieve bepaling van eiwitexpressie op enkelcelresolutie mogelijk is, wat het onderzoek naar heterogene en zeldzame celpopulaties vergemakkelijkt1,2,3. Hoewel conventionele flowcytometrische benaderingen voornamelijk gebruikmaken van antilichamen gericht tegen celoppervlakteantigenen, bevinden veel functioneel belangrijke eiwitten, zoals transcriptiefactoren, RNA-verwerkingsregulatoren en receptoren die ligand-geïnduceerde internalisatie ondergaan, zich in intracellulaire compartimenten. Bijgevolg zijn deze cytoplasmatische en nucleaire eiwitten onbereikbaar met standaardprotocollen voor oppervlaktekleuring. De integratie van intracellulaire kleuringsmethoden, die fixatie en permeabilisatie van cellulaire membranen omvatten, heeft het nut van flowcytometrie aanzienlijk uitgebreid door de kwantitatieve bepaling van intracellulaire eiwitten, cytokinen en signaleringsintermediaten mogelijk te maken, terwijl de high-throughput en multiparametrische mogelijkheden van conventionele flowcytometrische analyse behouden blijven4,5,6,7.
Een belangrijke beperking bij het detecteren van zowel oppervlakte-geassocieerde als intracellulaire eiwitten via flowcytometrie is de beschikbaarheid van geschikte antilichamen en, in veel gevallen, onvolledige kennis van epitopen of immunogeensequenties8,9. Aangezien immunofenotyperingsstrategieën grotendeels gebaseerd zijn op celoppervlaktemarkers, zijn de meeste commercieel verkrijgbare antilichamen die zijn gevalideerd voor flowcytometrie monoklonaal, herkennen ze enkelvoudige extracellulaire epitopen en zijn ze vooraf geconjugeerd aan fluoroforen. In tegenstelling hiermu beest polyklonale antilichamen in staat om meerdere epitopen binnen een doeleiwit te herkennen en worden ze algemeen gebruikt voor western blotting, immunohistochemie of immunofluorescentie. Deze antilichamen zijn echter doorgaans niet-geconjugeerd en daarom niet direct compatibel met standaard flowcytometrie-workflows. Het gebruik van niet-geconjugeerde primaire antilichamen in combinatie met fluorofoor-geconjugeerde secundaire antilichamen biedt een flexibel alternatief dat het bereik van detecteerbare targets uitbreidt en signaalamplificatie mogelijk kan maken, wat voordelig kan zijn voor eiwitten met een lage abundantie.
Om deze beperkingen aan te pakken, hebben we een protocol geoptimaliseerd voor het kleuren van eiwitten in K562 humane erythroleukemiecellen10. Intracellulaire kleuring vereist fixatie om de cellulaire structuur en toestand te behouden, evenals permeabilisatie om antilichamen toegang te geven tot intracellulaire compartimenten. In dit protocol worden cellen gefixeerd met paraformaldehyde (PFA), een veelgebruikt crosslinking fixatief dat de cellulaire morfologie behoudt en onder specifieke omstandigheden de permeabiliteit van het celmembraan kan verhogen11,12,13,14. Permeabilisatie met ethanol (EtOH) maakt de toegang van antilichamen tot intracellulaire compartimenten mogelijk, inclusief toegang tot nucleaire targets5,13,15. Permeabilisatie wordt gevolgd door kleuring met ongeconjugeerde primaire polyklonale antilichamen en fluorofoor-geconjugeerde secundaire antilichamen. Binnen deze workflow wordt behandeling met alleen PFA gebruikt voor de detectie van niet-oppervlakte immunoreactiviteit, terwijl een extra EtOH-permeabilisatiestap wordt gebruikt voor de detectie van nucleaire targets. Beoordeling van de specificiteit van de nucleaire kleuring via peptidecompetitie toonde een dosisafhankelijke inhibitie van antilichaambinding door het cognate peptide en niet door een aspecifieke controle. Over het algemeen breidt het gebruik van ongeconjugeerde primaire polyklonale antilichamen de toepasbaarheid van flowcytometrie uit voorbij de conventionele analyse van oppervlaktemarkers met fluorofoor-geconjugeerde antilichamen en biedt het een flexibele aanpak voor het beoordelen van intracellulaire eiwitexpressie met een resolutie op enkelcelniveau.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
K562-cellen werden commercieel aangeschaft en periodiek geauthenticeerd en getest op mycoplasma door de University of Arizona Genetics Core. Er waren geen menselijke deelnemers of gewervelde dieren betrokken bij deze studie.
1. Reagentia voorbereiden
- Kweek cellen onder steriele omstandigheden. Gebruik de K562 humane myelogene leukemie-cellijn voor dit protocol.
- Ontdooi en onderhoud K562-cellen in Roswell Park Memorial Institute (RPMI) medium aangevuld met 10% foetaal runderserum en 1% penicilline-streptomycine bij 37°C in 5% CO₂16. Zaai voor propagatie cellen uit bij een dichtheid van ongeveer 1 × 10⁵ cellen/mL, oogst wanneer culturen 75%–95% van de aanbevolen maximale celdichtheid bereiken en kweek niet verder dan 20 passages. Oogst voor kleuring cellen bij 50%–75% van de aanbevolen maximale celdichtheid.
- Bereid steriele 10× fosfaatgebufferde zoutoplossing (PBS) voor in een biologische veiligheidskabinet klasse II.
- Voeg 80 g natriumchloride (NaCl), 2 g kaliumchloride (KCl), 2,4 g kaliumfosfaat monobasisch (KH₂PO₄) en 14,4 g natriumfosfaat dibasisch (Na₂HPO₄) toe aan 800 mL geautoclaveerd water in een maatsilinder van 1 L.
- Voeg een roerkolf toe en roer de oplossing op een magnetische roerplaat tot al het poeder is opgelost.
- Gebruik een pH-meter om de pH op 7,2–7,4 in te stellen. Vul het uiteindelijke volume aan tot 1 L met geautoclaveerd water. Steriliseer de oplossing door filtratie met een flessenfilter voorzien van een nylon membraan met een poriegrootte van 0,2 µm.
- Verdun 10× PBS tot 1× PBS door 100 mL steriele 10× PBS toe te voegen aan 900 mL geautoclaveerd water in een biologische veiligheidskabinet klasse II.
- Bereid de fixeerbare levensvatbaarheidskleurstof voor volgens de instructies van de fabrikant. Voeg voor dit protocol 50 µL dimethylsulfoxide (DMSO) toe aan één buisje geliofiliseerde kleurstof en vortex tot de kleurstof volledig is opgelost.
- Bewaar de gereconstitueerde kleurstof bij −20°C, beschermd tegen licht, gedurende maximaal 1 jaar. Bewaar de kleurstof in kleine aliquots om herhaalde vries-dooi-cycli te vermijden.
- Bereid fluorescence-activated cell sorting (FACS) buffer door 10% 10× PBS, 86% water en 4% foetaal runderserum (FBS) te mengen. Meng bijvoorbeeld 10 mL 10× PBS, 86 mL water en 4 mL FBS om 100 mL FACS-buffer te bereiden.
- Bereid alleen het volume FACS-buffer dat nodig is voor ongeveer 2 weken.
- Bewaar FACS-buffer bij 4°C.
- Bereid 1% paraformaldehyde (PFA).
WAARSCHUWING: Behandel PFA als een brandbare, reactieve carcinogeen. Draag geschikte persoonlijke beschermingsmiddelen en bereid PFA voor in een gecertificeerde chemische zuurkast.- Meng 350 mL water en 50 mL 10× PBS, plaats de oplossing op een verwarmde roerplaat en verhit deze tot 65°C. Voeg geleidelijk 20 g PFA-poeder toe aan de verhitte oplossing om 4% PFA (gewicht/volume) te bereiden.
- Voeg 1–3 druppels 5 M natriumhydroxide (NaOH) toe om de oplosbaarheid van PFA te vergemakkelijken. Roer de oplossing op een verwarmde roerplaat gedurende ongeveer 20 min. Gebruik een pH-meter om de pH op 7,4 in te stellen.
- Vul het uiteindelijke volume aan tot 500 mL met water.
- Verdeel de 4% PFA in aliquots van 50 mL en bewaar bij −20°C gedurende maximaal 1 jaar. Bewaar de ontdooide 4% PFA na het ontdooien bij 4°C gedurende maximaal 2 maanden. Gooi alle resterende ontdooide 4% PFA na 2 maanden weg.
- Verdun de 4% PFA tot 1% PFA met behulp van 1× PBS en bewaar de verdunde oplossing bij 4°C gedurende maximaal 4 weken17.
- Bereid koude 70% ethanol (EtOH) door 70 mL ethanol (200-proof) te mengen met 30 mL Type I ultrapuur water.
- Bewaar de 70% EtOH bij −20°C gedurende maximaal 1 jaar. Houd de oplossing ijskoud vlak voordat deze aan de cellen wordt toegevoegd voor permeabilisatie.
2. Cellen verzamelen en tellen
- Overbreng de cellen van een 10 cm weefselkweekplaat naar een 15 mL centrifugebuis.
- Centrifugeer de cellen 5 min bij 600 × g bij 4°C met de rem aan om de cellen te pelletteren.
- Verwijder het kweekmedium en was de cellen door ze opnieuw te suspenderen in 5 mL 1× PBS. Centrifugeer opnieuw 5 min bij 600 × g bij 4°C met de rem aan en aspireer vervolgens het supernatant, zodat de celpellet overblijft.
- Resuspendeer de celpellet in 1× PBS. Tel de cellen met een hemocytometer of een automatische celsteller door 10 µL cel-suspensie te mengen met 10 µL trypaanblauw, de monsteroplossing op een telplaat te laden en de celconcentratie te bepalen.
OPMERKING: Ga alleen verder als de celviabiliteit >90% is om betrouwbare resultaten te garanderen. - Centrifugeer de celsuspensie 5 min bij 600 × g bij 4°C met de rem aan en aspireer het supernatant, zodat de celpellet overblijft. Resuspendeer de cellen tot een dichtheid van 2 × 10⁵ levensvatbare cellen/mL (minimaal 0,5 × 10⁵ levensvatbare cellen/mL).
- Verdeel 1 mL celsuspensie over het benodigde aantal monster- en controle-flowbuizen.
- Bereid aparte monsterbuizen voor voor elk doeleiwit en elke kleuringsworkflow. Oppervlakte- (Pre-PFA), Post-PFA, Pre-EtOH en Post-EtOH kleuringscondities worden uitgevoerd met onafhankelijke monsterbuizen in plaats van sequentiële kleuring van dezelfde cellen. Bereid bijvoorbeeld acht buizen wanneer twee doeleiwitten worden beoordeeld: Buis 1 (primair antilichaam A, Pre-PFA), Buis 2 (primair antilichaam B, Pre-PFA), Buis 3 (primair antilichaam A, Post-PFA), Buis 4 (primair antilichaam B, Post-PFA), Buis 5 (primair antilichaam A, Pre-EtOH), Buis 6 (primair antilichaam B, Pre-EtOH), Buis 7 (primair antilichaam A, Post-EtOH) en Buis 8 (primair antilichaam B, Post-EtOH).
OPMERKING: Voer, zoals weergegeven in de kleuringsworkflow (Figuur 1), de kleuring met het primaire en secundaire antilichaam voor de Pre-PFA en Pre-EtOH monsters uit op Dag 1. Voer de kleuring met het primaire en secundaire antilichaam voor de Post-PFA en Post-EtOH monsters uit op Dag 2. - Bereid ongekleurde en enkelgekleurde controlebuizen voor voor elke behandelingsconditie. Bereid bij het beoordelen van de viabiliteit en twee doeleiwitten één ongekleurde controle, één controle met enkel een viabiliteitskleurstof en één controle met enkel een secundair antilichaam voor elke behandelingsconditie.
OPMERKING: Hoewel het primaire antilichaam niet geconjugeerd is, kan een controle met enkel het primaire antilichaam worden opgenomen tijdens de validatie van de assay of bij het evalueren van aspecifieke binding van het primaire antilichaam. - Onderwerp alle ongekleurde en enkelgekleurde controlebuizen aan dezelfde behandelingen als de monsterbuizen. Als monsters zijn gefixeerd met 1% PFA en gepermeabiliseerd met 70% EtOH, verwerk de controlebuizen dan op identieke wijze.
- Bereid aparte monsterbuizen voor voor elk doeleiwit en elke kleuringsworkflow. Oppervlakte- (Pre-PFA), Post-PFA, Pre-EtOH en Post-EtOH kleuringscondities worden uitgevoerd met onafhankelijke monsterbuizen in plaats van sequentiële kleuring van dezelfde cellen. Bereid bijvoorbeeld acht buizen wanneer twee doeleiwitten worden beoordeeld: Buis 1 (primair antilichaam A, Pre-PFA), Buis 2 (primair antilichaam B, Pre-PFA), Buis 3 (primair antilichaam A, Post-PFA), Buis 4 (primair antilichaam B, Post-PFA), Buis 5 (primair antilichaam A, Pre-EtOH), Buis 6 (primair antilichaam B, Pre-EtOH), Buis 7 (primair antilichaam A, Post-EtOH) en Buis 8 (primair antilichaam B, Post-EtOH).
- Bereid enkelgekleurde compensatiecontroles met behulp van compensatie-beads.
OPMERKING: Beads kunnen in plaats van cellen worden gebruikt om compensatiecontroles voor te bereiden.- Label één compensatiecontrolebuis voor elke fluorofoor en één ongekleurde controlebuis. Bereid bij gebruik van een viabiliteitskleurstof en twee secundaire antilichamen gelabeld met verschillende fluoroforen vier buizen: één ongekleurde controle, één viabiliteitskleurstofcontrole (fluorofoor 1), één secundair antilichaam A-controle (fluorofoor 2) en één secundair antilichaam B-controle (fluorofoor 3).
OPMERKING: Gebruik bij gebruik van een amine-reactieve viabiliteitskleurstof amine-reactieve compensatie-beads voor de viabiliteitskleurstofcontrole. - Voeg slechts één kleurstof of antilichaam toe aan elke compensatiecontrolebuis, zodat elke controle positief is voor een enkele fluorofoor tijdens de flowcytometrische compensatie.
- Label één compensatiecontrolebuis voor elke fluorofoor en één ongekleurde controlebuis. Bereid bij gebruik van een viabiliteitskleurstof en twee secundaire antilichamen gelabeld met verschillende fluoroforen vier buizen: één ongekleurde controle, één viabiliteitskleurstofcontrole (fluorofoor 1), één secundair antilichaam A-controle (fluorofoor 2) en één secundair antilichaam B-controle (fluorofoor 3).
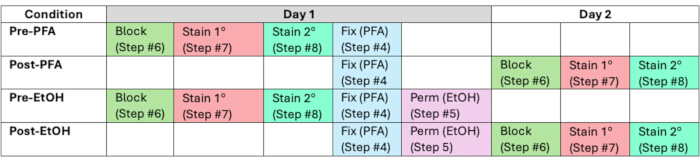
Figuur 1. Geoptimaliseerde kleuringsworkflow voor de detectie van oppervlakte-geassocieerde en intracellulaire targets. De workflow illustreert de volgorde en timing van fixatie, permeabilisatie, blokkeren, primaire antilichaamkleuring en secundaire antilichaamkleuring na kleuring met een fixeerbare levensvatbaarheids kleurstof. Er worden afzonderlijke workflows getoond voor de Pre-PFA, Post-PFA, Pre-EtOH en Post-EtOH condities. Primaire en secundaire antilichaamkleuringen worden uitgevoerd op Dag 1 voor de Pre-PFA en Pre-EtOH workflows en op Dag 2 voor de Post-PFA en Post-EtOH workflows. PFA, paraformaldehyde; EtOH, ethanol. Klik hier om een grotere versie van deze figuur te bekijken.
3. Kleur cellen met een fixeerbare levensvatbaarheidskleurstof
- Kleur de cellen met een fixeerbare levensvatbaarheidskleurstof volgens de instructies van de fabrikant. Voeg 1 µL van de stockoplossing van de levensvatbaarheidskleurstof (bereid in stap 1.4) rechtstreeks aan elke monsterbuis en aan de corresponderende enkelgekleurde controlebuis van de levensvatbaarheidskleurstof die 1 × 10⁶ cellen in 1 mL 1× PBS.
- Vortex zachtjes gedurende 3 s en incubeer de monsters gedurende 30 min bij kamertemperatuur, beschermd tegen licht.
OPMERKING: Bescherm de cellen tegen licht tijdens deze en alle volgende stappen. - Centrifugeer de celsuspensie 5 min lang bij 600 × g bij 4°C zet de rem vast, aspireer vervolgens het supernatant en laat de celpellet achter.
- Was de cellen tweemaal met 1 mL 1× PBS en resuspendeer het uiteindelijke celpellet in 100 µL van 1× PBS.
OPMERKING: Als cellulaire oppervlakte-targets worden gekleurd met fluorofoor-geconjugeerde primaire antilichamen, voer de oppervlaktekleuring in deze fase uit volgens de instructies van de fabrikant voordat u overgaat tot fixatie.
4. Behandel cellen met 1% PFA
OPMERKING: Voor Pre-PFA-monsters (zie stap 2.6.1 en figuur 1), voer de stappen 6, 7 en 8 uit voordat u met dit gedeelte verdergaat.
- Voeg aan de cellen die zijn geresuspendeerd in 100 µL 1× PBS 1 mL 1% PFA toe aan elke monsterbuis, inclusief alle buisjes met enkelvoudig gekleurde controles. Vortex zachtjes gedurende 3 s en incubeer de monsters gedurende 15–20 min bij kamertemperatuur, beschermd tegen licht.
- Centrifugeer de celsuspensie 5 min bij 600 × g bij 4°C met de rem aan. Aspireer en verwijder het supernatant, zodat het celpellet overblijft.
- Was het celpellet tweemaal door het te resuspenderen in 1 mL FACS-buffer, gevolgd door centrifugatie bij 600 × g gedurende 5 min bij 4°C met de rem aan.
- Resuspendeer het uiteindelijke celpellet in 100 µL FACS-buffer.
OPMERKING: Gefixeerde cellen (gekleurd of ongekleurd) kunnen gedurende 12–48 h worden bewaard in 1 mL FACS-buffer bij 4°C. Om het protocol te hervatten, centrifugeert u de celsuspensie 5 min bij 600 × g bij 4°C met de rem aan, aspireert u het supernatant en resuspendeert u het celpellet in 100 µL FACS-buffer.
5. Permeabiliseer cellen met EtOH
OPMERKING: Voer voor Pre-EtOH-monsters (zie Stap 2.6.1 en Figuur 1) de Stappen 6, 7 en 8 uit voordat u verdergaat met dit gedeelte.
- Voeg voorzichtig 1 mL ijskoude 70% EtOH toe aan de binnenwand van elke monsterbuis met 100 µL cel-suspensie en vortex direct daarna gedurende 5 s op ongeveer 50% vermogen. Herhaal deze procedure voor alle overige monsterbuizen en enkelvoudig gekleurde controlebuizen.
- Incubeer de buizen ten minste 2 u bij −20°C, beschermd tegen licht.
OPMERKING: Cellen kunnen gedurende 12–48 u in 1 mL 70% EtOH bij −20°C worden bewaard voordat het protocol wordt voortgezet. - Centrifugeer de cel-suspensie 5 min bij 600 × g bij 4°C met de rem ingeschakeld en aspireer vervolgens het supernatant, zodat de celpellet overblijft.
- Was de cellen drie keer met 1 mL FACS-buffer, waarbij tussen de wasbeurten door wordt gecentrifugeerd bij 600 × g gedurende 5 min bij 4°C met de rem ingeschakeld.
- Resuspendeer de uiteindelijke celpellet in 100 µL FACS-buffer.
6. Blokkeren van cellen
- Voeg 820 µL FACS-buffer en 80 µL normaal geiten serum (NGS) toe aan elke buis om een uiteindelijke blokkeringsoplossing te bereiden bestaande uit 92% FACS-buffer en 8% NGS. Vortex kortstondig gedurende 3 s en incubeer de monsters gedurende 30 min bij kamertemperatuur, stationair en beschermd tegen licht.
- Centrifugeer de celsuspensie bij 600 × g gedurende 5 min bij 4°C met de rem aan, en aspireer vervolgens het supernatant, waarbij de celpellet achterblijft.
- Was de cellen twee keer door de pellet opnieuw te suspenderen in 1 mL FACS-buffer, gevolgd door centrifugatie zoals beschreven in stap 6.2.
- Resuspendeer de uiteindelijke celpellet in 100 µL FACS-buffer.
7. Kleur de cellen met een niet-geconjugeerd primair antilichaam
- Voeg 0,5 µL van het niet-geconjugeerde primaire antilichaam toe aan 100 µL cel-suspensie (verdunning 1:200). Incubeer de monsters gedurende 1 u bij kamertemperatuur, beschermd tegen licht.
OPMERKING: De verdunning 1:200 is een aanbevolen startconcentratie en kan optimalisatie vereisen voor andere antilichamen.- Indien er peptide-competitie wordt uitgevoerd, voeg dan het peptide onmiddellijk vóór het toevoegen van het primaire antilichaam toe. In dit protocol werden peptiden getitreerd bij peptide-antilichaam molaire ratio's variërend van 50 tot 0,625, berekend ten opzichte van de antilichaamconcentratie (4,3 nM) in het reactiemengsel. Optimalisatie kan nodig zijn voor individuele peptide-antilichaam paren.
- Voeg 1 mL FACS-buffer toe en centrifugeer de cel-suspensie 5 min bij 600 × g bij 4°C met de rem aan. Aspireer het supernatant, waarbij de celpellet overblijft.
- Was de cellen nog twee keer met 1 mL FACS-buffer en centrifugeer zoals beschreven in Stap 7.2.
- Resuspendeer de uiteindelijke celpellet in 100 µL FACS-buffer.
8. Kleur de cellen met een fluorofoor-geconjugeerd secundair antilichaam
- Voeg een 1:200 verdunning van het fluorofoor-geconjugeerde secundaire antilichaam (0,5 µL antilichaam in 100 µL cel-suspensie) toe aan elke monsterbuis en de bijbehorende controlebuis.
OPMERKING: In dit protocol is Geit anti-konijn DyLight 488 secundair antilichaam gebruikt. - Incubeer de monsters gedurende 1 u bij kamertemperatuur, beschermd tegen licht.
- Voeg 1 mL FACS-buffer toe. Centrifugeer de cel-suspensie 5 min bij 600 × g bij 4°C met de rem aan, aspireer vervolgens het supernatant zodat de celpellet overblijft.
- Was de cellen tweemaal met 1 mL FACS-buffer door de centrifugatie te herhalen zoals beschreven in Stap 8.3.
- Resuspendeer de cellen in 300–500 µL FACS-buffer.
OPMERKING: Cellen kunnen gedurende 1–3 dagen in FACS-buffer bij 4°C worden bewaard, beschermd tegen licht, voorafgaand aan de flowcytometrische analyse.
9. Analyseer monsters via flowcytometrie
- Voer fluorescentiecompensatie uit met behulp van de geschikte enkelvoudig gekleurde controles. Analyseer de monsters op een flowcytometer en verzamel ten minste 5.000–10.000 levende enkelvoudige cel-events voor analyse. Voor dit protocol is FACSDiva-software gebruikt voor de data-acquisitie.
- Analyseer de gegevens door eerst debris uit te sluiten met forward scatter area (FSC-A) tegenover side scatter area (SSC-A), gevolgd door de uitsluiting van dubletten met FSC-height (FSC-H) tegenover FSC-width (FSC-W) en SSC-height (SSC-H) tegenover SSC-width (SSC-W). Sluit dode cellen uit met behulp van het kanaal voor de levensvatbaarheidskleurstof.
- Analyseer het percentage van de resterende levende enkelvoudige cellen dat positief of negatief is voor de geselecteerde doelwitproteïnen (zie Representatieve Resultaten). Stel positieve gates in met behulp van de ongekleurde controles en de controles met enkel secundaire antilichamen, en pas identieke gating-criteria toe op alle vergelijkbare monsters binnen dezelfde acquisitierun.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Het hier beschreven protocol maakt intracellulaire kleuring mogelijk van eiwitdoelen waarvoor geen commercieel beschikbare antilichamen zijn die gevalideerd zijn voor flowcytometrie. Als representatief voorbeeld werd de kleuring van splicingfactor 3a subunit 1 (SF3A1), een overal tot expressie gebracht eiwit voor splicing dat in de nucleus gelokaliseerd is, geëvalueerd met gebruik van een konijn polyklonaal antilichaam opgebracht tegen een peptide overeenkomend met aminozuren 18–37 van SF3A1 (SF3A118–37; EPKQP...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
De hier gepresenteerde resultaten benadrukken verschillende kritieke parameters voor de detectie van eiwitten via intracellulaire flowcytometrie met behulp van niet-geconjugeerde primaire antilichamen. Een belangrijke overweging is de permeabilisatiestrategie, die gekozen moet worden op basis van de intracellulaire lokalisatie van het doeleiwit. In de hier beschreven workflow maakte PFA-fixatie gevolgd door EtOH-permeabilisatie de detectie van het nucleaire eiwit SF3A1 mogelijk, terwijl EpoR-immunoreactiviteit werd gedet...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs hebben niets te verklaren.
Dankbetuigingen
De auteurs erkennen de financiële ondersteuning van SS door het National Institute of General Medical Sciences (R01GM127464) en het National Cancer Institute (P30CA023074), beide van de National Institutes of Health, het Valley Research Partnership Program (VRP P1-4009 en VRP77), en het Arizona Biomedical Research Center (ABRC: RFGA2022-010-30). De inhoud is uitsluitend de verantwoordelijkheid van de auteurs en vertegenwoordigt niet noodzakelijkerwijs de officiële standpunten van de National Institutes of Health. De auteurs erkennen tevens de ondersteuning van Dr. Mrinalini Kala, Directeur van de Flow Cytometry Core Facility, College of Medicine–Phoenix, University of Arizona.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 10× Fosfaatgebufferde zoutoplossing (PBS) | In-house | Omdat er geen brontekst is verstrekt, kan ik geen vertaling produceren. Voer a.u.b. de Engelse tekst in die u vertaald wilt hebben naar het Nederlands. | Alternatief: Commercieel verkrijgbare PBS |
| 15 mL centrifugebuizen | VWR | 89039-664 | Alternatief: Elke steriele centrifugebuis van passende afmeting |
| polystyreen buisjes met ronde bodem van 5 ml | Corning | 352052 | Alternatief: Elke flowcytometrie-buis die compatibel is met de beschikbare cytometer |
| Anti-konijn DyLight 488 secundair antilichaam | Thermo Fisher Scientific | PI35553 | Alternatief: Secundaire antilichamen die compatibel zijn met de gastsoort van het primaire antilichaam |
| Automatische celteller | Thermo Fisher Scientific | AMQAF2000 | Alternatief voor de hemocytometer |
| ArC Amine Reactive Compensation Bead Kit | Thermo Fisher Scientific | A10628 | Alternatief: Cellen; indien cellen worden gebruikt voor enkelvoudige kleuringscontroles, dienen alle controlebuisjes op identieke wijze te worden verwerkt als de monsterbuisjes |
| Flesfilter | Thermo Fisher Scientific | 595-4520 | Nylonmembraan; 0.2 µm |
| Celcountingspreiglaasjes | Thermo Fisher Scientific | C10228 | Alleen vereist bij gebruik van een automatische celteller |
| Dimethylsulfoxide (DMSO) | Geleverd met levensvatbaarheidskleurstofkit | Omdat er geen brontekst is verstrekt, kan ik geen vertaling produceren. Voer aub de tekst in die u vertaald wilt hebben. | Wordt gebruikt om de gevriesdroogde levensvatbaarheidskleurstof te reconstitueren |
| Ethanol, 200 proof | Thermo Fisher Scientific | BP28184 | Moleculaire biologie-kwaliteit; gebruikt voor het bereiden van ijskoud 70% ethanol |
| Primair polyklonaal antilichaam tegen erytropoëtinereceptor | Bioss | BS-1424R | |
| Foetaal runderserum (FBS) | Omega Scientific | FB-12 | Alternatief: Elk FBS dat is gevalideerd voor de doellijn van cellen |
| Flowcytometer | BD Biosciences | BD Canto II | Alternatief: Elke geschikte flowcytometer |
| Hemocytometer | Hausser Scientific | HS3200 | Alternatief: Geautomatiseerde celsteller |
| Verwarmde magnetische roerplaat | Thermo Fisher Scientific | SP88857100 | Gebruikt voor de bereiding van PBS en paraformaldehyde |
| K562-menselijke myelogene leukemiecellen | ATCC | CCL-243 | Kan worden gekocht bij elke andere geauthenticeerde bron |
| Live-or-Dye fixeerbare levensvatbaarheidskleurstof (405/545) | Biotium | 32009 | Alternatief: Elke compatibele fixeerbare viabiliteitskleurstof. Niet-fixeerbare kleurstoffen (bijv. 7-AAD) zijn niet geschikt |
| Normaal geiten serum | Thermo Fisher Scientific | 16210064 | Gebruikt voor blokkeren |
| Paraformaldehydepoeder | Sigma-Aldrich | P6148 | Alternatief: Commercieel verkrijgbare paraformaldehyde-oplossing |
| pH-meter/elektrode | Accumet | AB15 | Gebruikt om de pH van de buffer aan te passen |
| Kaliumchloride (KCl) | Thermo Fisher Scientific | BP366-1 | |
| Kaliumfosfaatmonobasisch (KH2PO4) | Thermo Fisher Scientific | BP362-1 | |
| SF3A1 Primair polyklonaal antilichaam | In-house | Omdat u geen brontekst hebt verstrekt, is er geen inhoud om te vertalen. Voer aub de Engelse tekst in die u naar het Nederlands vertaald wilt hebben. | |
| Natriumchloride (NaCl) | Thermo Fisher Scientific | BP358-1 | |
| Natriumhydroxide-oplossing (5 M) | MilliporeSigma | S8263 | Alternatief: Bereid een 5 M oplossing uit natriumhydroxide-pellets |
| Natriumfosfaat dibasisch (Na2HPO4) | Thermo Fisher Scientific | BP332-1 | |
| Roerstaafje | VWR | 74950-286 | Gebruikt in combinatie met de magnetische roerplaat |
| Trypanblauw, 0,4% | Thermo Fisher Scientific | 15250061 | Gebruikt voor het tellen van de celviabiliteit |
| UltraComp eBeads compensatiekraaltjes | Thermo Fisher Scientific | 01-2222-42 | Alternatief: Cellen; indien cellen worden gebruikt voor single-stain controls, dienen alle controlebuizen op identieke wijze te worden verwerkt als de monsterbuizen |
Referenties
- Schippel N, Sharma S. Dynamics of human hematopoietic stem and progenitor cell differentiation to the erythroid lineage. Exp Hematol. 2023;123:1-17. DOI:10.1016/j.exphem.2023.05.001.
- Schippel N, Kala M, Sharma S. Erythropoietin-dependent acquisition of CD71hiCD105hi phenotype within CD235a- early erythroid progenitors. Stem Cells. 2025;43(12). DOI:10.1093/stmcls/sxaf061.
- Robinson JP. Flow cytometry: past and future. BioTechniques. 2022;72(4):159-169. DOI:10.2144/btn-2022-0005.
- Freer G, Rindi L. Intracellular cytokine detection by fluorescence-activated flow cytometry: basic principles and recent advances. Methods. 2013;61(1):30-38. DOI:10.1016/j.ymeth.2013.03.035.
- Krutzik PO, Nolan GP. Intracellular phospho-protein staining techniques for flow cytometry: monitoring single-cell signaling events. Cytometry A. 2003;55(2):61-70. DOI:10.1002/cyto.a.10072.
- Manso BA, Medina KL. Standardized flow-cytometry-based protocol to simultaneously measure transcription factor levels. STAR Protoc. 2021;2(2):100485. DOI:10.1016/j.xpro.2021.100485.
- Hallden G, Andersson U, Hed J, Johansson SG. A new membrane permeabilization method for the detection of intracellular antigens by flow cytometry. J Immunol Methods. 1989;124(1):103-109. DOI:10.1016/0022-1759(89)90191-9.
- Kalina T, Lundsten K, Engel P. Relevance of antibody validation for flow cytometry. Cytometry A. 2020;97(2):126-136. DOI:10.1002/cyto.a.23895.
- Voskuil JL. The challenges with the validation of research antibodies. F1000Res. 2017;6:161. DOI:10.12688/f1000research.10851.1.
- Koeffler HP, Golde DW. Human myeloid leukemia cell lines: a review. Blood. 1980;56(3):344-350.
- Bernard E, et al. Assessing the limitations of paraformaldehyde fixation for accurate cell surface receptor measurement. Front Pharmacol. 2026;17:1727410. DOI:10.3389/fphar.2026.1727410.
- Jamur MC, Oliver C. Permeabilization of cell membranes. Methods Mol Biol. 2010;588:63-66. DOI:10.1007/978-1-59745-324-0_9.
- Cheng R, et al. Influence of fixation and permeabilization on the mass density of single cells: a surface plasmon resonance imaging study. Front Chem. 2019;7:588. DOI:10.3389/fchem.2019.00588.
- Hobro AJ, Smith NI. An evaluation of fixation methods: spatial and compositional cellular changes observed by Raman imaging. Vib Spectrosc. 2017;91:31-45. DOI:10.1016/j.vibspec.2016.10.012.
- Schimenti KJ, Jacobberger JW. Fixation of mammalian cells for flow cytometric evaluation of DNA content and nuclear immunofluorescence. Cytometry. 1992;13(1):48-59. DOI:10.1002/cyto.990130109.
- Kandarian F, Sunga GM, Arango-Saenz D, Rossetti M. A flow cytometry-based cytotoxicity assay for the assessment of human NK cell activity. J Vis Exp. 2017;(126). DOI:10.3791/56191.
- Bapat A, Keita N, Sharma S. Pan-myeloid differentiation of human cord blood derived CD34+ hematopoietic stem and progenitor cells. J Vis Exp. 2019;(150). DOI:10.3791/59836.
- Martelly W, et al. Identification of a noncanonical RNA binding domain in the U2 snRNP protein SF3A1. RNA. 2019;25(11):1509-1521. DOI:10.1261/rna.072256.119.
- Sharma S, et al. Stem-loop 4 of U1 snRNA is essential for splicing and interacts with the U2 snRNP-specific SF3A1 protein during spliceosome assembly. Genes Dev. 2014;28(22):2518-2531. DOI:10.1101/gad.248625.114.
- Sulahian R, Cleaver O, Huang LJ. Ligand-induced EpoR internalization is mediated by JAK2 and p85 and is impaired by mutations responsible for primary familial and congenital polycythemia. Blood. 2009;113(21):5287-5297. DOI:10.1182/blood-2008-09-179572.
- Sinclair AM, et al. Erythropoietin receptor transcription is neither elevated nor predictive of surface expression in human tumour cells. Br J Cancer. 2008;98(6):1059-1067. DOI:10.1038/sj.bjc.6604220.
- Li X, et al. Oxidative stress induces the decline of brain EPO expression in aging rats. Exp Gerontol. 2016;83:89-93. DOI:10.1016/j.exger.2016.07.012.
- Liu T, et al. Multifaceted roles of a bioengineered nanoreactor in repressing radiation-induced lung injury. Biomaterials. 2021;277:121103. DOI:10.1016/j.biomaterials.2021.121103.
- Zhang Y, et al. Erythropoietin receptor is a risk factor for prognosis: a potential biomarker in lung adenocarcinoma. Pathol Res Pract. 2023;251:154891. DOI:10.1016/j.prp.2023.154891.
- Liu J, et al. Lithium chloride promotes endogenous synthesis of CLA in bovine mammary epithelial cells. Biol Trace Elem Res. 2024;202(2):513-526. DOI:10.1007/s12011-023-03679-z.
- Wu G, et al. EPO promotes the progression of rheumatoid arthritis by inducing desialylation via increasing the expression of neuraminidase 3. Ann Rheum Dis. 2024;83(5):564-575. DOI:10.1136/ard-2023-224852.
- Sudji IR, et al. Membrane disintegration caused by the steroid saponin digitonin is related to the presence of cholesterol. Molecules. 2015;20(11):20146-20160. DOI:10.3390/molecules201119682.
- Niklas J, Melnyk A, Yuan Y, Heinzle E. Selective permeabilization for the high-throughput measurement of compartmented enzyme activities in mammalian cells. Anal Biochem. 2011;416(2):218-227. DOI:10.1016/j.ab.2011.05.039.
- Liu J, Xiao N, DeFranco DB. Use of digitonin-permeabilized cells in studies of steroid receptor subnuclear trafficking. Methods. 1999;19(3):403-409. DOI:10.1006/meth.1999.0876.
- Krawczyk E, Suprynowicz FA, Sudarshan SR, Schlegel R. Membrane orientation of the human papillomavirus type 16 E5 oncoprotein. J Virol. 2010;84(4):1696-1703. DOI:10.1128/JVI.01968-09.
- Goldenthal KL, et al. Postfixation detergent treatment for immunofluorescence suppresses localization of some integral membrane proteins. J Histochem Cytochem. 1985;33(8):813-820. DOI:10.1177/33.8.3894499.
- Fahlberg MD, et al. Overcoming fixation and permeabilization challenges in flow cytometry by optical barcoding and multi-pass acquisition. Cytometry A. 2024;105(11):838-848. DOI:10.1002/cyto.a.24904.
- Law JP, et al. The importance of Foxp3 antibody and fixation/permeabilization buffer combinations in identifying CD4+CD25+Foxp3+ regulatory T cells. Cytometry A. 2009;75(12):1040-1050. DOI:10.1002/cyto.a.20815.
- Schippel N, et al. Erythropoietin mediates glycerophospholipid remodeling during human early erythropoiesis. bioRxiv. 2026. DOI:10.64898/2026.02.20.707106.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar