Genen gerelateerd aan N6-methyladenosine (m6A) zijn ontregeld bij borstkanker, met beperkte correlatie met methylatie of veranderingen in kopienummers. Zes genen, waaronder YTHDF3, waren prognostisch. YTHDF3 is een onafhankelijke prognostische factor, betrokken bij RNA-metabolisme, DNA-reparatie, telomeerstabiliteit en immuuninfiltratie. De upregulering ervan werd klinisch bevestigd, wat verder onderzoek vereist.
Onderzoeksartikel
Uitgebreide analyse van m6A-regulatoren identificeert YTHDF3 als een veelbelovende prognostische biomarker voor borstkanker
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Het expressielandschap en de prognostische waarde van N6-methyladenosine (m6A)-gerelateerde genen blijven grotendeels ongekarakteriseerd bij borstkanker. Hier voerden we een integratieve analyse uit van hun expressieprofielen en klinische relevantie. Met behulp van multi-omics datasets en experimentele validatie voerden we een systematisch onderzoek uit naar m6A-gerelateerde genen in borstkanker. Deze genen vertoonden uitgesproken differentiële expressie bij borstkanker, maar hun correlatie met moleculaire kenmerken zoals promotormethylering en veranderingen in het kopieaantal was beperkt. Univariate survivalanalyse gaf aan dat abnormale expressie van RBM15B, METTL16, HNRNPC, YTHDF1, YTHDF3 en IGF2BP1 significant gelinkt was aan de prognose van de patiënt. Multivariate Cox-regressie identificeerde bovendien verhoogde YTHDF3-expressie als een onafhankelijke prognostische factor. Analyse van functioneel netwerk wees aan dat YTHDF3 mogelijk niet alleen betrokken is bij RNA-verwerking en -metabolisme, maar ook bij DNA-reparatie, pri-miRNA-verwerking, telomeerstabiliteit en immuuninfiltratie. Bovendien werd upregulatie van YTHDF3 mRNA bevestigd in klinische borstkankermonsters. Gezamenlijk zijn m6A-gerelateerde genen ontregeld bij borstkanker en correleren ze met patiëntuitkomsten, wat hun biomarkerpotentieel benadrukt, waarbij YTHDF3 grondig onderzoek vereist.
Inleiding
Borstkanker is een zeer heterogene maligniteit en is wereldwijd de meest gediagnosticeerde kanker geworden, waarbij het een van de belangrijkste oorzaken van kankergerelateerde sterfte onder vrouwen is, met naar schatting 2,3 miljoen nieuwe gevallen en meer dan 680.000 sterfgevallen in 2020 1,2. Ondanks therapeutische vooruitgang blijft een definitieve genezing voor alle patiënten ongrijpbaar, wat de noodzaak onderstreept om moleculaire biomarkers te identificeren voor vroege diagnose en prognose.
Abnormale epigenetische modificaties zijn een kenmerk van kanker3. Onder de verschillende RNA-modificaties is N6-methyladenosine (m6A) een epitranscriptomisch kenmerk dat steeds meer wordt erkend vanwege zijn rol bij borstkanker4. m6A is een omkeerbare modificatie die voornamelijk wordt afgezet in de 3'-UTR's van zoogdier-mRNA's en wordt georkestreerd door "schrijvers" (methyltransferases), "gummen" (demethylasen) en "lezers" (bindende eiwitten)5. Opkomend bewijs wijst op m6A-gerelateerde genen bij tumorontwikkeling en progressie6. Het landschap van m6A-regulerende factoren bij borstkanker blijft echter slecht gedefinieerd, en er ontbreken uitgebreide genetische en epigenetische analyses.
In deze studie identificeerden we differentieel tot expressie gebrachte m6A-gerelateerde genen in borstkanker met behulp van openbare omics-databases en experimentele validatie. We beoordeelden verder hun klinische prognostische waarde en onderzochten onderliggende moleculaire mechanismen via overlevingsanalyse en voorspelling van regulatief netwerk.
Protocol
Genexpressie en overlevingsgegevens
De cohortgegevens van de Cancer Genome Atlas (TCGA), bestaande uit 1.034 borstkankertumormonsters en 104 normale aangrenzende weefsels (NAT's), werden verkregen uit The Human Protein Atlas, samen met klinische informatie voor 947 patiënten7. Deze gegevens werden gebruikt om de mRNA-expressieprofielen van m6A-gerelateerde genen en hun associatie met prognose te analyseren. Daarnaast gebruikten we de Kaplan-Meier Plotter (KMplotter) online tool, die meerdere borstkankerdatasets samenvoegt, om de associatie tussen YTHDF3-expressie en overleving8 te valideren. Om expressiepatronen verder te valideren, includeerden we ook gegevens van 92 gezonde borstweefsels uit het Genotype-Tissue Expression (GTEx) project via Breast Cancer Gene-Expression Miner v4.7 9,10. De eiwit- en mRNA-niveaus van YTHDF3 in verschillende subtypen borstkanker en normale weefsels werden geanalyseerd door UALCAN, gebaseerd op het Clinical Proteomic Tumor Analysis Consortium (CPTAC) en de TCGA-dataset11.
Genetische en epigenetische evaluatie
Genetische veranderingen werden onderzocht met cBioPortal, met de focus op de dataset voor invasieve borstkanker (TCGA, Provisional, 1.108 gevallen)12. Promotormethyleringsgegevens werden verkregen uit MethHC, dat 839 borstkankermonsters en gedeeltelijk gekoppelde aangrenzende normale controles13 omvatte.
Genregulatienetwerk en immuuninfiltratieanalyse
Eiwit-eiwitinteracties werden onderzocht met STRING (betrouwbaarheidsscore ingesteld op 0,4)14. Genannotatie en padverrijking werden uitgevoerd met Metascape (p < 0,01, minimale telling van 3, verrijkingsfactor > 1,5)15. De associatie van YTHDF3-expressie in borstkanker met immuuninfiltratie, inclusief B-cellen, CD8+ T-cellen, CD4+ T-cellen, macrofagen, neutrofilen en dendritische cellen (DC's), werd geanalyseerd met behulp van de Tumor Immune Estimation Resource (TIMER). Genexpressieniveau, genormaliseerd met tumorzuiverheid, werd weergegeven op het meest linkse paneel16.
Kwantitatieve reverse transcription polymerasekettingreactie (qRT-PCR)
Alle deelnemers gaven schriftelijke geïnformeerde toestemming, en de studie werd goedgekeurd door de ethische commissie van het Affiliated Hospital van Southwest Medical University (goedkeuringsnummer KY2022124) en werd uitgevoerd in overeenstemming met de principes van de Verklaring van Helsinki. Bevroren borsttumormonsters en gematchte aangrenzende niet-tumormonsters werden gebruikt voor totale RNA-extractie. De concentratie en zuiverheid van het geëxtraheerde RNA werden beoordeeld met een spectrofotometer, en alleen monsters met A260/A 280-verhoudingen van 1,8–2,0 werden opgenomen. De integriteit van het RNA werd bevestigd door 1,5% agarosegelelektroforese. Eerstestreng cDNA werd vervolgens gegenereerd uit 1 μg totaal RNA in een 20 μL-reactie volgens de instructies van de fabrikant. Er werd een kwantitatieve real-time PCR uitgevoerd, waarbij elke 20 μL reactie 10 μL 2× SYBR Green master mix, 0,4 μL voor- en achteruitprimers (elk 10 μM), 2 μL verdund cDNA (1:10) en 7,2 μL nucleasevrij water bevatte. qRT-PCR werd uitgevoerd zoals eerder beschreven17. Primers waren: β-actine-F, GAAGATCAAGATCATTGCTCCT; β-actine-R, TACTCCTGCTTGCTGATCCA; YTHDF3-F, AAAAGACGGGCCTCTTCCTC; YTHDF3-R, TTGGCCGAGTGATTGTTCCA. De thermocyclische omstandigheden waren 95 °C gedurende 3 minuten, gevolgd door 40 cycli van 95 °C voor 10 seconden, 55 °C voor 20 seconden en 72 °C voor 20 seconden (fluorescentie-opname bij 72 °C). Smeltcurveanalyse (95 °C tot 60 °C, increment 0,5 °C/s) werd uitgevoerd om de primerspecificiteit te bevestigen. De relatieve expressie werd berekend met behulp van de 2−ΔΔCt-methode .
Statistische methode
Ongepaarde t-tests werden gebruikt voor tweegroepsvergelijkingen. Kaplan-Meier overlevingsanalyse met de log-rank test en multivariate Cox-regressie werd gebruikt om prognostische factoren te beoordelen. Voor qRT-PCR-validatie werden gepaarde monsters vergeleken met een tweezijdige gekoppelde Student's t-test op ΔCt-waarden. Voor Figuur 1 werden paargewijze vergelijkingen uitgevoerd met behulp van de Dunnett-Tukey-Kramer-test. P < 0,05 werd als statistisch significant beschouwd.
Resultaten
Differentiële mRNA-expressie van m6A-gerelateerde genen bij borstkanker
Analyse van TCGA- en GTEx-gegevens (1.034 tumoren, 104 NAT's, 92 gezonde weefsels) toonde aan dat de meeste m6A-gerelateerde genen verschillend tot expressie kwamen (Figuur 1). In verhouding tot gezonde borstweefsels waren 10 genen significant opgereguleerd: KIAA1429, RBM15, RBM15B, HNRNPC, YTHDF1, YTHDF2, YTHDF3, IGF2BP1, IGF2BP3 en ALKBH5 (allemaal P < 0,0001, behalve RBM15 P < 0,001). Acht genen werden gedownreguleerd: WTAP, METTL3, METTL14, HNRNPA2B1, YTHDC1, YTHDC2, IGF2BP2 en FTO (P < 0,05 tot P < 0,0001). METTL16 en eIF3A lieten geen significant verschil zien. Bij het vergelijken van tumoren met NAT's was HNRNPA2B1 opgereguleerd, terwijl YTHDF3, eIF3A en ALKBH5 werden gedownreguleerd; RBM15, RBM15B en YTHDF2 vertoonden geen verschil (Figuur 1). Het gebruik van NAT's als controles is ter discussie gesteld, wat mogelijk de afwijkingen met gezonde weefselvergelijkingen verklaart18,19. Interessant genoeg werd in de CPTAC-dataset een trend waargenomen naar een hogere YTHDF3-eiwitabundantie over alle borstkankersubtypes vergeleken met normale weefsels (P < 0,0001). Daarnaast werd significant hogere mRNA-expressie van YTHDF3 alleen waargenomen in luminale subtypes van borstkanker vergeleken met normale weefsels (P = 0,004, < 0,01) (Aanvullende figuur S1). Over het algemeen is er een significante disregulatie van m6A-gerelateerde genen zichtbaar bij borstkanker.
Promotormethylering en genamplificatie van m6A-gerelateerde genen bij borstkanker
DNA-methylering speelt een belangrijke rol in epigenetische regulatie van gentranscriptie, en de promotor hypermethylering remt mRNA-expressie20. MethHC-analyse toonde significante promotormethyleringsverschillen alleen aan voor IGF2BP1, IGF2BP2 en IGF2BP3 in tumoren versus controles (P < 0,005). De downregulatie van IGF2BP2 mRNA kan deels worden toegeschreven aan de hypermethylering ervan. cBioPortal-analyse toonde aan dat WTAP en ALKBH5 mRNA-downregulatie vertoonden, terwijl KIAA1429 (VIRMA), YTHDF1, YTHDF3 en IGF2BP1 genamplificatie vertoonden die geassocieerd was met hun upregulatie (Supplemental Figure S2, Supplemental Figure S3 en Supplemental Figure S4). Deze bevindingen suggereren dat de mRNA-niveaus van m6A-gerelateerde genen niet voornamelijk worden aangedreven door promotormethylering of genamplificatie.
Overlevingsanalyse van m6A-gerelateerde genen bij borstkanker
Overlevingsanalyse van 947 patiënten toonde aan dat een lage RBM15B-expressie en hoge expressie van METTL16, HNRNPC, YTHDF1, YTHDF3 en IGF2BP1 significant gecorreleerd waren met een verminderde algehele overleving (Figuur 2 en Figuur 3). Multivariate Cox-regressie, gecorrigeerd voor leeftijd, stadium en ras, bevestigde dat YTHDF3-upregulatie een onafhankelijke voorspeller was van een slechte algehele overleving (HR: 1,024, 95% BI: 1,003–1,046, P = 0,024) (Tabel 1). Voor externe validatie toonde analyse met de KMplotter online tool aan dat een hoge YTHDF3-expressie een slechte ziekteprognose voorspelt (Aanvullende Figuur S5). Andere genen waren niet onafhankelijk significant (Aanvullende Tabel S1).
Potentieel moleculair netwerk en immuuninfiltratie van m6A-gerelateerd gen YTHDF3
STRING-analyse van YTHDF3 (met beperkte interactoren tot 50) identificeerde een netwerk met 224 randen en significante verrijking (P < 1e-16). YTHDF3 is nauw verbonden met METTL3, ALKBH5, WTAP, METTL14 en andere (Figuur 4A). Metascape-verrijkingsanalyse identificeerde 13 significante functionele clusters (P < 0,01, minimumaantal 3, verrijkingsfactor > 1,5; Figuur 4B). De hoogst gerangschikte cluster was mRNA-metabole regulatie (GO1903311, 22 genen). Aanvullende kankergerelateerde clusters waren onder andere DNA-dealkylatieherstel (GO0006307), pri-miRNA-verwerking (GO0031053) en telomerasestabilisatie (GO1904356). De volledige lijst van clusternamen, geassocieerde genen en verrijkingsstatistieken wordt gegeven in Aanvullende Tabel S2. Bovendien toonden de resultaten significante positieve correlaties aan tussen YTHDF3-expressie en immuuncellen (alle P < 0,01) (Aanvullende figuur S6). Zo kan de upregulatie van YTHDF3 geassocieerd zijn met mRNA-metabolisme, DNA-reparatie, telomeerbehoud en immuuninfiltratie.
Opgereguleerde mRNA-expressie van YTHDF3 bij borstkanker
Borstkankerweefsels en aangrenzende normale borstweefsels zijn verzameld van 20 patiënten die tussen juli 2023 en oktober 2023 een operatie ondergingen op de afdeling borstchirurgie, het geaffilieerde ziekenhuis van Southwest Medical University. qRT-PCR-analyse van deze gepaarde monsters toonde significant een hogere expressie van YTHDF3 mRNA in tumorweefsels dan in aangrenzende normale weefsels (P = 0,001) (Aanvullende Figuur S7 en Aanvullende Tabel S3).
Beschikbaarheid van gegevens
Alle datasets die in deze studie zijn geanalyseerd, zijn openbaar beschikbaar in de volgende open-access repositories. Genexpressie en klinische gegevens: Borstkanker RNA-seq expressiegegevens en bijbehorende klinische informatie zijn verkregen uit The Cancer Genome Atlas (TCGA-BRCA) via The Human Protein Atlas (https://www.proteinatlas.org/). Aanvullende normale borstweefselexpressiegegevens werden verkregen uit het Genotype-Tissue Expression (GTEx) project (dbGaP-accessie: phs000424.v8.p2) via Breast Cancer Gene-Expression Miner v4.7 (http://bcgenex.ico.unicancer.fr/). Overlevingsvalidatie werd uitgevoerd met de Kaplan-Meier Plotter (https://kmplot.com). Eiwit- en mRNA-expressiegegevens werden verkregen via UALCAN (http://ualcan.path.uab.edu/). Genetische veranderingen: Somatische mutatie- en kopienummerwijzigingen voor de invasieve borstkankerdataset (TCGA, Provisional, 1108 monsters) werden geraadpleegd via cBioPortal (https://www.cbioportal.org/). DNA-promotormethylering: Methyleringsgegevens werden verkregen uit MethHC (http://methhc.mbc.nctu.edu.tw/), dat 839 borstkankermonsters bevat en deels gekoppelde aangrenzende normale controles bevat. Interactie tussen eiwitten en eiwit en verrijking van de route: Functionele netwerkanalyse werd uitgevoerd met STRING v12.0 (https://string-db.org/, betrouwbaarheidsscore 0,4) en Metascape (http://metascape.org/). Immuno-infiltratieanalyse werd uitgevoerd met behulp van TIMER (https://cistrome.shinyapps.io/timer/). Alle aanvullende gegevens die aan de cijfers ten grondslag liggen, zijn op redelijk verzoek beschikbaar bij de corresponderende auteur.
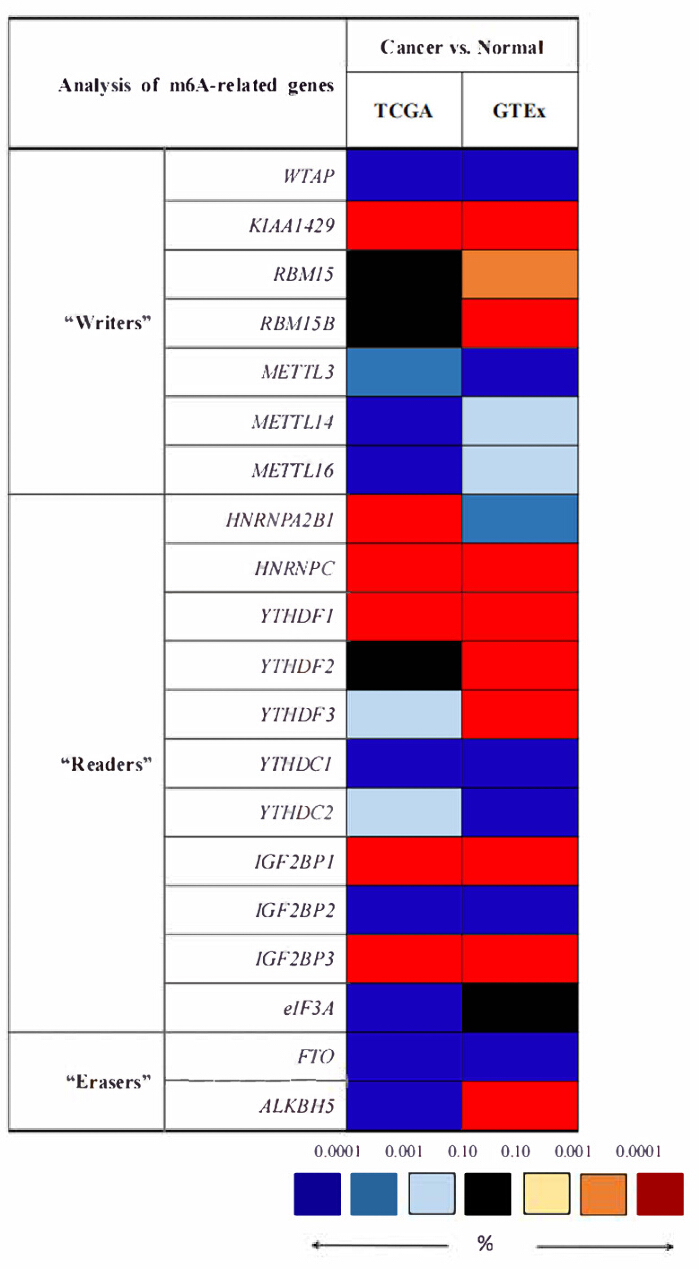
Figuur 1. Differentiële mRNA-expressie van N6-methyladenosine (m6A)-gerelateerde genen bij borstkanker. Rood duidt op upregulatie; Blauw duidt downregulatie aan, zwart geeft geen expressieverschil aan, en wit geeft geen genexpressiegegevens aan. Kleurcodering weerspiegelt statistische significantie. De Dunnett-Tukey-Kramer-test werd gebruikt voor paargewijze vergelijkingen. Opmerking: "Normaal" omvat de vergelijking tussen tumoren en NATs in TCGA, evenals de vergelijking tussen tumoren en gezonde weefsels in GTEx. Afkortingen: NATs = normale aangrenzende weefsels; TCGA = De Cancer Genome Atlas; GTEx = Genotype-weefselexpressie. Klik hier om een grotere versie van deze figuur te bekijken.
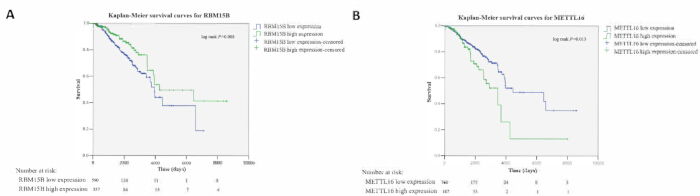
Figuur 2. Associatie tussen afwijkende mRNA-expressie van de m6A-"schrijvers" RBM15B en METTL16 en de algehele overleving bij borstkankerpatiënten. (A) Een lage expressie van RBM15B was geassocieerd met een kortere algehele overleving (log-rank test, P = 0,008, <0,01); (B) Hoge expressie van METTL16 was geassocieerd met een slechte prognose (log-rank test, P = 0,013, <0,05). Patiënten werden gedichotomiseerd in groepen met hoge en lage expressie volgens de optimale cut-off waarde. n = 947 (TCGA-BRCA cohort). De blauwe en groene krommen vertegenwoordigen respectievelijk de laag- en hoog-expressiegroepen. De eenheid van mRNA-expressie was fragmenten per kilobase van transcript per miljoen gemapte reads. Afkorting: TCGA-BRCA = The Cancer Genome Atlas Breast Invasive Carcinoma; m6A = N6-methyladenosine. Klik hier om een grotere versie van deze figuur te bekijken.
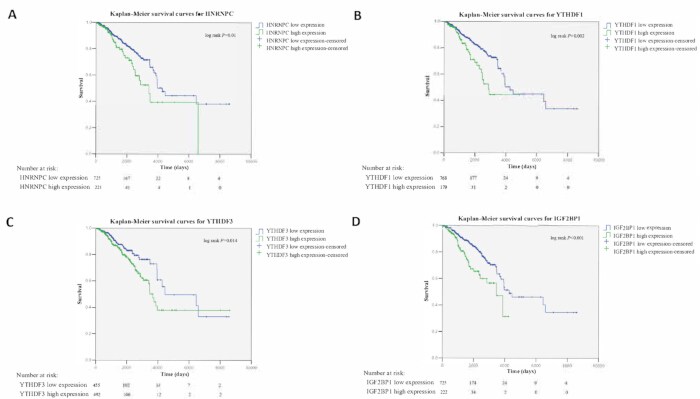
Figuur 3. Correlatie tussen abnormale mRNA-expressie van de m6A-"lezers" HNRNPC, YTHDF1, YTHDF3 en IGF2BP1 met de algehele overleving bij borstkankerpatiënten. (A) Hoge HDRNPC mRNA-expressie was geassocieerd met een verminderde algehele overleving (log-rank test, P = 0,01, <0,05). (B-D) Hoge expressie van YTHDF1, YTHDF3 en IGF2BP1 was significant geassocieerd met een slechtere prognose (log-rank test, respectievelijk P = 0,002, P = 0,014 en P < 0,001). Patiënten werden gedichotomiseerd in groepen met hoge en lage expressie volgens de optimale cut-off waarde. n = 947 (TCGA-BRCA cohort). De blauwe en groene krommen vertegenwoordigen respectievelijk de laag- en hoog-expressiegroepen. De eenheid van gen-mRNA-expressie was fragmenten per kilobase van transcript per miljoen gemapte reads. Afkortingen: TCGA-BRCA = De Cancer Genome Atlas Breast Invasive Carcinoma; m6A = N6-methyladenosine. Klik hier om een grotere versie van deze figuur te bekijken.
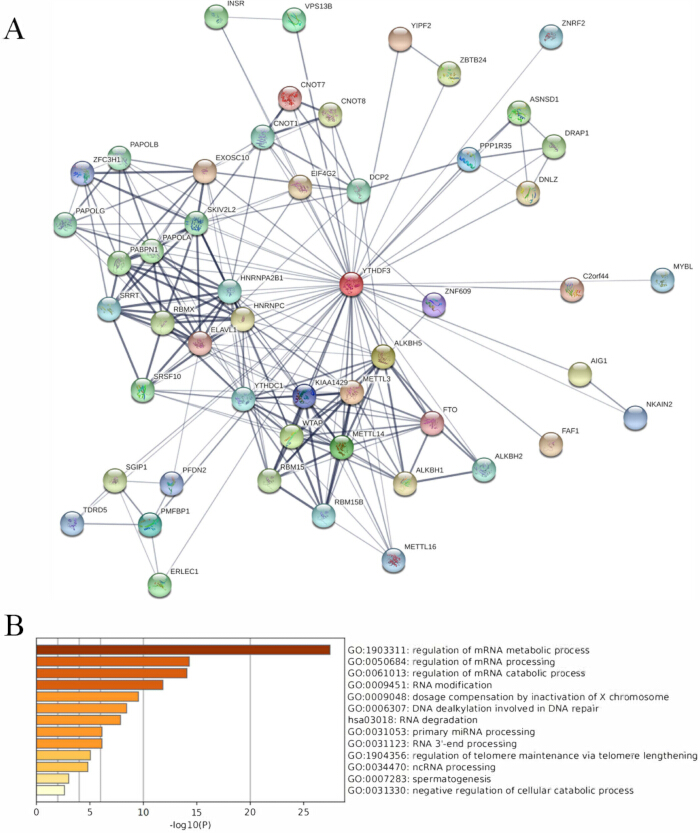
Figuur 4. Het potentiële moleculaire regulatienetwerk van YTHDF3. (A) Eiwitinteractienetwerk geconstrueerd door de STRING-database te bevragen met YTHDF3 als lokaas (betrouwbaarheidsscore ≥ 0,4, maximale interactors = 50). Randwijdtes geven de sterkte van ondersteunend bewijs aan. (B) Metascape-analyse identificeerde 13 significante functionele clusters (P < 0,01, minimumaantal = 3, verrijkingsfactor > 1,5). Ontologiebronnen omvatten de Kyoto Encyclopedia of Genes and Genomes-routes en Gene Ontology Biological Processes. Klik hier om een grotere versie van deze figuur te bekijken.
| Parameters | HR | 95% BI | p-waarde |
| YTHDF3 | 1.024 | 1.003-1.046 | 0.024 |
| Leeftijd | 1.036 | 1.023-1.050 | <0,001 |
| Race | 1.275 | 0.892-1.821 | 0.182 |
| Podium | 2.263 | 1.796-2.851 | <0,001 |
Tabel 1: Multivariate Cox survival regressie-analyse resultaten van m6A-gerelateerd gen YTHDF3. Afkortingen: HR = hazard ratio; 95% BI = betrouwbaarheidsinterval.
Aanvullende figuur S1. De eiwit- en mRNA-niveaus van YTHDF3 in verschillende subtypen borstkanker en normale weefsels uit de CPTAC- en TCGA-datasets. De eiwitexpressie van YTHDF3 in (A) primaire tumoren en normale weefsels en (B) subtypen borstinvasieve carcinoom. Z-waarden geven het aantal standaardafwijkingen van de mediane waarde aan tussen de steekproeven voor het bijbehorende kankertype. De CPTAC log2 spectrale tellingverhoudingswaarden werden eerst genormaliseerd binnen elk steekproefprofiel en daarna over de steekproeven. (C) De mRNA-expressie (RNA-seq, fragmenten per kilobase van transcript per miljoen gemapte leestjes) van YTHDF3 in verschillende subtypen van borstinvasieve carcinoom. Afkortingen: CPTAC = het Clinical Proteomic Tumor Analysis Consortium; TCGA = De Cancer Genome Atlas. Klik hier om dit bestand te downloaden.
Aanvullende figuur S2. Promotormethylatiestatus van m6A-gerelateerde genen opgehaald uit de MethHC-database. (A) Promotormethylatie van m6A-"schrijvers" bij borstkanker en normale controles. (B) Promotormethylering van m6A "gummen" bij borstkanker en normale controles. (C) Promotormethylering van m6A-"lezers" bij borstkanker en normale controles. Rood, borstkanker; groen, normale controle. *P < 0,05, **P < 0,005. Afkorting: m6A = N6-methyladenosine. Klik hier om dit bestand te downloaden.
Aanvullende figuur S3. Genmutaties en veranderingen in het kopienummer geanalyseerd door cBioPortal voor m6A-"schrijvers" en "gummen" (TCGA, Provisional, n = 1.108). (A) Wijzigingen in m6A "schrijvers." (B) Wijzigingen in m6A "gummen." Balkgrafieken geven de frequentie van elk type alteratie aan: missense-mutaties, amplificaties, diepe deleties en meerdere alteraties. Alleen genen met een alteratiefrequentie ≥ 1% worden getoond. De totale alteratiefrequentie per gen wordt rechts weergegeven. Afkortingen: TCGA = The Cancer Genome Atlas; m6A = N6-methyladenosine. Klik hier om dit bestand te downloaden.
Aanvullende figuur S4. Genmutatie en kopienummerveranderingen geanalyseerd door cBioPortal voor m6A "lezers" (TCGA, Provisional, n = 1.108). Balkgrafieken geven de frequentie van elk type alteratie aan: missense-mutaties, amplificaties, diepe deleties en meerdere alteraties. Alleen genen met een alteratiefrequentie ≥ 1% worden getoond. De totale alteratiefrequentie per gen wordt rechts weergegeven. Afkortingen: TCGA = The Cancer Genome Atlas; m6A = N6-methyladenosine. Klik hier om dit bestand te downloaden.
Aanvullende figuur S5. Correlatie van YTHDF3 met de overleving van borstkankerpatiënten in KMplotter. (A) Hoge expressie van YTHDF3 mRNA was geassocieerd met een verminderde algehele overleving (P = 0,011, <0,05). (B-D) Hoge expressie van YTHDF3 was significant geassocieerd met een slechtere terugkeervrije overleving, een overleving zonder metastasen op afstand en overleving na progressie (P = 1,9e-09, P = 0,06 en P = 0,029, respectievelijk). Alle P-waarden werden berekend met de log-rank test. Het aantal risicopatiënten wordt onder elke grafiek weergegeven. De optimale afkap werd bepaald door de auto-selecterende beste afkapfunctie van het gereedschap. Afkorting: KMplotter = Kaplan-Meier Plotter. Klik hier om dit bestand te downloaden.
Aanvullende figuur S6. Correlatie van YTHDF3-expressie met immuuninfiltratie bij borstkanker. YTHDF3-expressie correleerde positief met infiltratieniveaus van B-cellen, CD4+ T-cellen, CD8+ T-cellen, macrofagen, neutrofielen en DC's in de TIMER-dataset. Tumorzuiverheid werd gebruikt als covariaat in de partiële Spearman-correlatieanalyse. Afkortingen: DC's = dendritische cellen; TIMER = Tumor Immune Estimation Resource. Klik hier om dit bestand te downloaden.
Aanvullende figuur S7. Kwantitatieve reverse transcription polymerasekettingreactievalidatie van YTHDF3 mRNA-expressie in 20 gepaarde borstkankerweefsels en aangrenzende normale weefsels. De niveaus van YTHDF3 mRNA werden genormaliseerd tot β-actine. Gegevens worden gepresenteerd als 2⁻ΔΔCt-waarden . Statistische vergelijking werd uitgevoerd met behulp van een tweezijdige gekoppelde Student's t-test op ΔCt-waarden (P = 0,001). Afkortingen: NC = aangrenzend normale borstweefsel; BrCa = borstkankerweefsels. Klik hier om dit bestand te downloaden.
Aanvullende Tabel S1. Samengevat van multivariate overlevingsanalyse in m6A-gerelateerde genen. Afkortingen : HR = hazard ratio; 95% BI = betrouwbaarheidsinterval. Klik hier om dit bestand te downloaden.
Aanvullende Tabel S2. De annotatie en verrijking resulteren van 13 YTHDF3-gerelateerde genen gebaseerd op Metascape.Klik hier om dit bestand te downloaden.
Aanvullende Tabel S3. Klinische informatie van 20 gepaarde borstkankermonsters.Klik hier om dit bestand te downloaden.
Discussie
Ondanks therapeutische verbeteringen blijft vroege diagnose en gepersonaliseerde behandeling voor borstkanker een uitdaging, waardoor de ontdekking van nieuwe moleculaire doelennoodzakelijk is 21. Deze studie integreerde multi-omics-gegevens om m6A-gerelateerde genen bij borstkanker te karakteriseren. Onze resultaten tonen wijdverspreide disregulatie van deze genen, grotendeels onafhankelijk van promotormethylering of genamplificatie, en koppelen abnormale expressie van verschillende genen, met name YTHDF3, aan een slechte prognose. We bevestigden verder de upregulatie van YTHDF3 in klinische monsters en voorspelden de betrokkenheid ervan in kankergerelateerde routes.
m6A-methylatie wordt geïnstalleerd door een "writer"-complex waaronder WTAP, KIAA1429, RBM15, METTL3 en METTL1422. Hoewel WTAP oncogeen is bij diverse maligniteiten 23,24,25, impliceert de downregulatie bij borstkanker contextafhankelijke functies. KIAA1429 upregulatie is in overeenstemming met haar gerapporteerde rol bij het reguleren van CDK1 bij borstkanker25. RBM15, bekend om hematopoëse en sarcomen26,27, was opgereguleerd, terwijl RBM15B-upregulatie geassocieerd was met een betere overleving, wat overeenkomt met de positieve correlatie met BAP128. De downregulation van METTL3, ondanks berichten over remming van let-7g, is door anderenwaargenomen: 29,30. METTL14 downregulatie is consistent met de rol als tumorsuppressor via m6A-modificatie31. METTL16 uitdrukking blijft controversieel en vereist verder onderzoek29,32.
Wat betreft "erasers" werd FTO in onze cohort verlaagd, vergelijkbaar met sommige TCGA-gebaseerde studies29, hoewel tegengestelde rapporten suggereren dat het progressie bevordert via BNIP333. ALKBH5 vertoonde variabele expressie afhankelijk van de controlegroep en is betrokken bij het behouden van borstkankerstamheid onder hypoxie34,35.
De YTH-domeinbevattende "readers" herkennen m6A, samen met HNRNPC en HNRNPA2B136. HNRNPA2B1 werd opgereguleerd, in lijn met haar rol in STAT3/ERK1/2 signalering37,38. De upregulatie van HNRNPC is consistent met zijn functie bij het reguleren van dsRNA-geïnduceerde interferonresponsen39.
YTHDF1 en YTHDF2 vertonen dubbele rollen bij verschillende kankers40,41. Steeds meer bewijs wijst op YTHDF3 bij oncogene processen: het bevordert hepatocellulair carcinoom via EGFR/STAT342, glioblastoom via EGFR/ATK/ERK/p2143, en uitzaaiing van baarmoederhalskanker door metabole herprogrammering44. Onze studie toonde upregulatie van YTHDF1, YTHDF2 en YTHDF3 aan in borstkanker versus gezonde weefsels, waarbij YTHDF3-upregulatie verder experimenteel werd bevestigd. Dit ondersteunt verder onderzoek naar YTHDF3 bij borstkanker. YTHDC1 en YTHDC2 werden gedownreguleerd, hoewel andere studies hun prometastatische rol bij endometrium- en darmkankerrapporteren 45,46.
IGF2BP-eiwitten dienen ook als m6A-lezers47. IGF2BP1 upregulering sluit aan bij de bekende rol in het ondersteunen van de groei van clonogene48. IGF2BP2 werd afgezwakt, mogelijk door promotormethylering, in tegenstelling tot meldingen over zijn promigratorische rol49. IGF2BP3 upregulatie is consistent met de bevordering van proliferatie via TRIM2550 en coöperatieve metastasen met IGF2BP2 bij drievoudig-negatieve borstkanker51. eIF3A, hoewel hier gedownreguleerd, is voorgesteld als therapeutisch doel52,53. Er is gerapporteerd dat de toename van het aantal kopieën correleert met YTHDF1 en IGF2BP1 expressie in andere kankers54. Deze bevindingen bevestigen dat m6A-dysregulatie wijdverspreid is bij borstkanker.
Cruciaal is dat we YTHDF3 als een onafhankelijke prognostische factor hebben geïdentificeerd, waarmee recente studies 55,56,57,58,59 worden bevestigd. Andere m6A-genen zoals FTO en IGF2BP3 zijn ook in verband gebracht met een slechte prognose en chemoresistentie bij borstkanker 33,60,61.
Onze routeverrijking benadrukte de verwachte rollen van YTHDF3 in RNA-metabolisme62. Meer opvallend suggereerde het betrokkenheid bij DNA-dealkylatieherstel via ALKBH-familieleden63,64. Bovendien suggereren verbanden met pri-miRNA-verwerking via HNRNPA2B1, SRRT en METTL3 65,66,67,68, en met telomerasestabilisatie via EXOSC10 en DCP2 69, op mogelijke veelzijdige mechanismen. Intrigerend is dat YTHDF3-overexpressie in verband wordt gebracht met metastase van borstkanker in de hersenen door de vertaling van ST6GALNAC5 en GJA170 te versterken. Recente studies hebben het oncogene repertoire verder uitgebreid: YTHDF3 bleek de glycolyse en proliferatie via de mTOR-HIF1α-LDHA as71 te verbeteren; het bevorderen van osteolytische botmetastasen via m6A-afhankelijke translatie van ZEB1 en SMAD572; bij drievoudig negatieve borstkanker stabiliseert YTHDF3 CENPI mRNA om tumorgenese73 aan te wakkeren; en het faciliteert de epitheel-mesenchymale overgang en metastase door eIF4B te rekruteren om Notch2-translatie74 te stimuleren. Recente studies benadrukken consequent het bredere m6A-regulatienetwerk bij borstkanker, waaronder piR-1170/WTAP-gemedieerde methylatieherprogrammering in hersenmetastase75 en POP1-afhankelijke, door YTHDF2 erkende afbraak van CDKN1A-mRNA in TNBC76. Deze studies suggereren dat YTHDF3 betrokken kan zijn bij diverse kwaadaardige processen. YTHDF3 kan dus een veelbelovende prognostische biomarker vertegenwoordigen, hoewel verdere mechanistische studies naar de rol ervan in borstkankergroei, apoptose en metastase essentieel zijn.
Interessant genoeg toonde de TIMER-analyse een algemeen positieve correlatie aan tussen YTHDF3-expressie en de infiltratieniveaus van verschillende subsets van immuuncellen bij borstkanker. De biologische basis voor deze observatie is momenteel onbekend en kan een algehele verandering van het tumormicro-milieu bij YTHDF3-hoge tumoren weerspiegelen. Toegewijde immunogenomische en functionele studies zijn nodig om de specifieke rol van YTHDF3 in het vormgeven van het immuunlandschap van borstkanker te ontleden.
Deze studie kent verschillende beperkingen. Ten eerste zijn de analyses voornamelijk gebaseerd op openbare datasets; het integreren van TCGA- en GTEx-gegevens kan batcheffecten introduceren door verschillen in sampleverwerking, sequencingplatforms en normalisatiepijplijnen, en het retrospectieve karakter van deze databases brengt inherente selectie- en annotatiebiases met zich mee. Ten tweede was de klinische validatiecohort klein met beperkte follow-up, en werden nieuw ontdekte m6A-gerelateerde genen niet opgenomen. Ten derde ontbreekt onafhankelijke cohortvalidatie van de prognostische waarde van YTHDF3, en de inconsistenties tussen mRNA- en eiwitexpressie blijven onopgelost. Bovendien ontbreekt direct in vivo en in vitro bewijs voor de biologische functie van YTHDF3 bij borstkanker, zijn er geen geneesmiddelgevoeligheids- of therapie-responsanalyses uitgevoerd, en zijn de specifieke mechanismen waarmee YTHDF3 m6A-modificatie op zijn downstream-doelen mediteert, niet onderzocht. Deze kanttekeningen rechtvaardigen een voorzichtige interpretatie van onze bevindingen. Toekomstige prospectieve studies met gestandaardiseerde protocollen, grotere steekproefgroottes en functionele experimenten zijn noodzakelijk om YTHDF3 als biomarker te valideren en de mechanistische rol ervan bij borstkanker te verduidelijken.
Samenvattend evalueerde deze integratieve analyse uitgebreid m6A-gerelateerde genen bij borstkanker. Hoewel genetische en epigenetische veranderingen een beperkte invloed hadden op genexpressie, waren de genen over het algemeen ontregeld en geassocieerd met prognose. Onze bevindingen geven aan dat YTHDF3 mogelijk als een onafhankelijke prognostische biomarker dient, wat verdere biologische onderzoeken naar borstkanker vereist.
Openbaarmakingen
De auteurs hoeven geen belangenconflicten aan te geven.
Dankbetuigingen
Dit werk werd gefinancierd door de Natural Science Foundation of Sichuan Province (subsidienummer: 2022NSFSC1425), Sichuan Medical Association Tumor Special Research Project (subsidienummer: 2024HR20), Luzhou - Southwest Medical University Research Project (subsidienummer: 2024LZXNYDJ051), Beijing Xisike Clinical Oncology Research Foundation (subsidienummer: Y-SS2025MS-0009) en Beijing Kechuang Medical Development Foundation (subsidienummer: KC2023-JX-0288-BM74).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Breast Cancer Gene-Expression Miner v4.7 | Omics Data Science Unit of Integrated Center for Oncology | http://bcgenex.ico.unicancer.fr/ | Wordt gebruikt om GTEx normale borst weefselexpressiegegevens te verkrijgen; vermeld in Methoden/Beschikbaarheid van gegevens |
| cBioPortal | Niet van toepassing | https://www.cbioportal.org/ | Genetische verandering en kopieer-nummer veranderingsanalyse; vermeld in Methoden/ Beschikbaarheid van gegevens |
| Clinical Proteomic Tumor Analysis Consortium (CPTAC) | Clinical Proteomic Tumor Analysis Consortium | Niet van toepassing | Proteomische dataset gebruikt via UALCAN; vermeld in Methoden/Beschikbaarheid van gegevens |
| Genotype-Tissue Expression (GTEx) project | GTEx Consortium | dbGaP accession phs000424.v8.p2 | Normaal borstweefselexpressie gegevensbron; vermeld in Methoden/Beschikbaarheid van gegevens |
| Hieff qPCR SYBR Green Master Mix (No Rox) | YEASEN | qPCR mastermix; vermeld in auteurscorrectie | |
| Hifair III 1st Strand cDNA Synthesis SuperMix for qPCR | YEASEN | Eerste-streng cDNA-synthese; vermeld in auteurscorrectie | |
| Kaplan-Meier Plotter (KMplotter) | Niet van toepassing | https://kmplot.com | Online overlevingsvalidatietool; vermeld in Methoden/Beschikbaarheid van gegevens |
| Metascape | Ondersteund door NIH-grants U19 AI106754 U19 AI135972 R01 DA03373 | http://metascape.org/ | Geenanotaties en padverrijkingsanalyse; vermeld in Methoden/Beschikbaarheid van gegevens |
| MethHC | Niet van toepassing | http://methhc.mbc.nctu.edu.tw/ | DNA-promotormethyleringsgegevens/ bron; vermeld in Methoden/Beschikbaarheid van gegevens |
| NanoDrop 2000 spectrofotometer | Thermo Fisher Scientific | RNA-concentratie en zuiverheid meting; vermeld in auteurscorrectie | |
| QuantStudio 7 Flex Real-Time PCR System | Applied Biosystems | Kwantitatieve real-time PCR; vermeld in auteurscorrectie | |
| SPSS 13.0 | Niet vermeld in manuscript | Versie 13.0 | Statistische analyses; vermeld in auteurscorrectie |
| STRING v12.0 | STRING Consortium | https://string-db.org/ | Eiwit-eiwitinteractienetwerk analyse; vertrouwensscore 0.4; vermeld in Figuur 4/Beschikbaarheid van gegevens |
| The Cancer Genome Atlas (TCGA-BRCA) | The Cancer Genome Atlas | TCGA-BRCA | Geenaanduiding, klinische gegevens, genetische verandering/kopieer-nummer datasetbron; vermeld in Methoden/ Beschikbaarheid van gegevens |
| The Human Protein Atlas | The Human Protein Atlas | https://www.proteinatlas.org/ | Bron gebruikt om TCGA borstkanker RNA-seq expressie en klinische gegevens te verkrijgen; vermeld in Methoden/Beschikbaarheid van gegevens |
| TIMER | X Shirley Liu Lab | https://cistrome.shinyapps.io/timer/ | Immune infiltratie-analyse; vermeld in Methoden/Beschikbaarheid van gegevens |
| TRIzol reagent | Invitrogen | RNA-extractie; vermeld in auteurscorrectie | |
| UALCAN | The University of Alabama at Birmingham | http://ualcan.path.uab.edu/ | Eiwit- en mRNA-expressieanalyse op basis van CPTAC en TCGA-gegevens; vermeld in Methoden/Beschikbaarheid van gegevens |
Referenties
- Yeo SK, Guan JL. Breast cancer: multiple subtypes within a tumor? Trends Cancer. 2017;3(11):753-60.
- Sung H et al. Global cancer statistics 2020: GLOBOCAN estimates of incidence and mortality worldwide for 36 cancers in 185 countries. CA Cancer J Clin. 2021;71(3):209-49.
- Bennett RL, Licht JD. Targeting epigenetics in cancer. Annu Rev Pharmacol Toxicol. 2018;58:187-207.
- Wu L et al. Changes of N6-methyladenosine modulators promote breast cancer progression. BMC Cancer. 2019;19(1):326.
- Roignant JY, Soller M. m6A in mRNA: an ancient mechanism for fine-tuning gene expression. Trends Genet. 2017;33(6):380-90.
- Pan Y et al. Multiple functions of m6A RNA methylation in cancer. J Hematol Oncol. 2018;11(1):48.
- Uhlen M et al. Towards a knowledge-based Human Protein Atlas. Nat Biotechnol. 2010;28(12):1248-50.
- Győrffy B. Survival analysis across the entire transcriptome identifies biomarkers with the highest prognostic power in breast cancer. Comput Struct Biotechnol J. 2021;19:4101-9.
- Jézéquel P et al. bc-GenExMiner 4.5: new mining module computes breast cancer differential gene expression analyses. Database (Oxford). 2021;2021:baab007.
- GTEx Consortium. The GTEx Consortium atlas of genetic regulatory effects across human tissues. Science. 2020;369(6509):1318-30.
- Chandrashekar DS et al. UALCAN: an update to the integrated cancer data analysis platform. Neoplasia. 2022;25:18-27.
- Cerami E et al. The cBio cancer genomics portal: an open platform for exploring multidimensional cancer genomics data. Cancer Discov. 2012;2(5):401-4.
- Huang WY et al. MethHC: a database of DNA methylation and gene expression in human cancer. Nucleic Acids Res. 2015;43(Database issue):D856-61.
- Szklarczyk D et al. STRING v10: protein-protein interaction networks, integrated over the tree of life. Nucleic Acids Res. 2015;43(Database issue):D447-52.
- Zhou Y et al. Metascape provides a biologist-oriented resource for the analysis of systems-level datasets. Nat Commun. 2019;10(1):1523.
- Li T et al. TIMER: a web server for comprehensive analysis of tumor-infiltrating immune cells. Cancer Res. 2017;77(21):e108-10.
- Wang Y et al. Zinc finger and SCAN domain-containing 18 suppresses the proliferation, self-renewal, and drug resistance of glioblastoma cells. Heliyon. 2023;9(6):e17000.
- Cancer Genome Atlas Research Network. The Cancer Genome Atlas Pan-Cancer analysis project. Nat Genet. 2013;45(10):1113-20.
- Aran D et al. Comprehensive analysis of normal adjacent to tumor transcriptomes. Nat Commun. 2017;8(1):1077.
- Xiang TX et al. Aberrant promoter CpG methylation and its translational applications in breast cancer. Chin J Cancer. 2013;32(1):12-20.
- Pasculli B, Barbano R, Parrella P. Epigenetics of breast cancer: biology and clinical implication in the era of precision medicine. Semin Cancer Biol. 2018;51:22-35.
- Meyer KD, Jaffrey SR. Rethinking m6A readers, writers, and erasers. Annu Rev Cell Dev Biol. 2017;33:319-42.
- Jo HJ et al. WTAP regulates migration and invasion of cholangiocarcinoma cells. J Gastroenterol. 2013;48(11):1271-82.
- Chen Y et al. WTAP facilitates progression of hepatocellular carcinoma via m6A-HuR-dependent epigenetic silencing of ETS1. Mol Cancer. 2019;18(1):127.
- Qian JY et al. KIAA1429 acts as an oncogenic factor in breast cancer by regulating CDK1 in an N6-methyladenosine-independent manner. Oncogene. 2019;38(33):6123-41.
- Garcia-Dios DA et al. MED12, TERT promoter and RBM15 mutations in primary and recurrent phyllodes tumours. Br J Cancer. 2018;118(2):277-84.
- Hu M, Yang Y, Ji Z, Luo J. RBM15 functions in blood diseases. Curr Cancer Drug Targets. 2016;16(7):579-85.
- Shahriyari L, Abdel-Rahman M, Cebulla C. BAP1 expression is prognostic in breast and uveal melanoma but not colon cancer and is highly positively correlated with RBM15B and USP19. PLoS One. 2019;14(2):e0211507.
- Zhang B et al. Expression and prognostic characteristics of m6A RNA methylation regulators in breast cancer. Front Genet. 2020;11:604597.
- Cai X et al. HBXIP-elevated methyltransferase METTL3 promotes the progression of breast cancer via inhibiting tumor suppressor let-7g. Cancer Lett. 2018;415:11-9.
- Gu C et al. Mettl14 inhibits bladder TIC self-renewal and bladder tumorigenesis through N6-methyladenosine of Notch1. Mol Cancer. 2019;18(1):168.
- Yeon SY et al. Frameshift mutations in repeat sequences of ANK3, HACD4, TCP10L, TP53BP1, MFN1, LCMT2, RNMT, TRMT6, METTL8 and METTL16 genes in colon cancers. Pathol Oncol Res. 2018;24(3):617-22.
- Niu Y et al. RNA N6-methyladenosine demethylase FTO promotes breast tumor progression through inhibiting BNIP3. Mol Cancer. 2019;18(1):46.
- Zhang C et al. Hypoxia-inducible factors regulate pluripotency factor expression by ZNF217- and ALKBH5-mediated modulation of RNA methylation in breast cancer cells. Oncotarget. 2016;7(40):64527-42.
- Zhang C et al. Hypoxia induces the breast cancer stem cell phenotype by HIF-dependent and ALKBH5-mediated m6A-demethylation of NANOG mRNA. Proc Natl Acad Sci U S A. 2016;113(14):E2047-56.
- Liao S, Sun H, Xu C. YTH domain: a family of N6-methyladenosine (m6A) readers. Genomics Proteomics Bioinformatics. 2018;16(2):99-107.
- Alarcón CR et al. HNRNPA2B1 is a mediator of m6A-dependent nuclear RNA processing events. Cell. 2015;162(6):1299-308.
- Hu Y et al. Splicing factor hnRNPA2B1 contributes to tumorigenic potential of breast cancer cells through STAT3 and ERK1/2 signaling pathway. Tumour Biol. 2017;39(3):1010428317694318.
- Wu Y et al. Function of HNRNPC in breast cancer cells by controlling the dsRNA-induced interferon response. EMBO J. 2018;37(23):e99017.
- Nishizawa Y et al. Oncogene c-Myc promotes epitranscriptome m6A reader YTHDF1 expression in colorectal cancer. Oncotarget. 2018;9(7):7476-86.
- Zhong L et al. YTHDF2 suppresses cell proliferation and growth via destabilizing the EGFR mRNA in hepatocellular carcinoma. Cancer Lett. 2019;442:252-61.
- Hu B et al. m6A reader YTHDF3 triggers the progression of hepatocellular carcinoma through the YTHDF3/m6A-EGFR/STAT3 axis and EMT. Mol Carcinog. 2023;62(10):1599-614.
- Lee HH et al. YTHDF3 modulates EGFR/AKT/ERK/p21 signaling axis to promote cancer progression and osimertinib resistance of glioblastoma cells. Anticancer Res. 2023;43(12):5485-98.
- Zhong S et al. The inhibition of YTHDF3/m6A/LRP6 reprograms fatty acid metabolism and suppresses lymph node metastasis in cervical cancer. Int J Biol Sci. 2024;20(3):916-36.
- Zhang B et al. YT521 promotes metastases of endometrial cancer by differential splicing of vascular endothelial growth factor A. Tumour Biol. 2016;37(12):15543-9.
- Tanabe A et al. RNA helicase YTHDC2 promotes cancer metastasis via the enhancement of the efficiency by which HIF-1α mRNA is translated. Cancer Lett. 2016;376(1):34-42.
- Huang H et al. Recognition of RNA N6-methyladenosine by IGF2BP proteins enhances mRNA stability and translation. Nat Cell Biol. 2018;20(3):285-95.
- Fakhraldeen SA et al. Two isoforms of the RNA binding protein, coding region determinant-binding protein (CRD-BP/IGF2BP1), are expressed in breast epithelium and support clonogenic growth of breast tumor cells. J Biol Chem. 2015;290(21):13386-400.
- Li Y, Francia G, Zhang JY. p62/IMP2 stimulates cell migration and reduces cell adhesion in breast cancer. Oncotarget. 2015;6(32):32656-68.
- Wang Z et al. Blockade of miR-3614 maturation by IGF2BP3 increases TRIM25 expression and promotes breast cancer cell proliferation. EBioMedicine. 2019;41:357-69.
- Kim HY, Ha Thi HT, Hong S. IMP2 and IMP3 cooperate to promote the metastasis of triple-negative breast cancer through destabilization of progesterone receptor. Cancer Lett. 2018;415:30-9.
- Meyer KD et al. 5′ UTR m6A promotes cap-independent translation. Cell. 2015;163(4):999-1010.
- Yin JY et al. eIF3a: a new anticancer drug target in the eIF family. Cancer Lett. 2018;412:81-7.
- Bell JL et al. IGF2BP1 harbors prognostic significance by gene gain and diverse expression in neuroblastoma. J Clin Oncol. 2015;33(11):1285-93.
- Liu L et al. N6-methyladenosine-related genomic targets are altered in breast cancer tissue and associated with poor survival. J Cancer. 2019;10(22):5447-59.
- Anita R, Paramasivam A, Priyadharsini JV, Chitra S. The m6A readers YTHDF1 and YTHDF3 aberrations associated with metastasis and predict poor prognosis in breast cancer patients. Am J Cancer Res. 2020;10(8):2546-54.
- Zhao G et al. Gene signatures and cancer-immune phenotypes based on m6A regulators in breast cancer. Front Oncol. 2021;11:756412.
- Demircan T, Yavuz M, Akgul S. m6A pathway regulators are frequently mutated in breast invasive carcinoma and may play an important role in disease pathogenesis. OMICS. 2021;25(10):660-78.
- Lv W et al. Analysis and validation of m6A regulatory network: a novel circBACH2/hsa-miR-944/HNRNPC axis in breast cancer progression. J Transl Med. 2021;19(1):527.
- Ohashi R et al. IMP3 contributes to poor prognosis of patients with metaplastic breast carcinoma: a clinicopathological study. Ann Diagn Pathol. 2017;31:30-5.
- Ohashi R et al. Prognostic value of IMP3 expression as a determinant of chemosensitivity in triple-negative breast cancer. Pathol Res Pract. 2017;213(9):1160-5.
- Chen XY, Zhang J, Zhu JS. The role of m6A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Drabløs F et al. Alkylation damage in DNA and RNA: repair mechanisms and medical significance. DNA Repair (Amst). 2004;3(11):1389-407.
- Fedeles BI et al. The AlkB family of Fe(II)/α-ketoglutarate-dependent dioxygenases: repairing nucleic acid alkylation damage and beyond. J Biol Chem. 2015;290(34):20734-42.
- Villarroya-Beltri C et al. Sumoylated hnRNPA2B1 controls the sorting of miRNAs into exosomes through binding to specific motifs. Nat Commun. 2013;4:2980.
- Hu X et al. Depletion of Ars2 inhibits cell proliferation and leukemogenesis in acute myeloid leukemia by modulating the miR-6734-3p/p27 axis. Leukemia. 2019;33(5):1090-101.
- Chen Y et al. Ars2 promotes cell proliferation and tumorigenicity in glioblastoma through regulating miR-6798-3p. Sci Rep. 2018;8(1):15602.
- Alarcón CR et al. N6-methyladenosine marks primary microRNAs for processing. Nature. 2015;519(7544):482-5.
- Shukla S et al. Inhibition of telomerase RNA decay rescues telomerase deficiency caused by dyskerin or PARN defects. Nat Struct Mol Biol. 2016;23(4):286-92.
- Chang G et al. YTHDF3 induces the translation of m6A-enriched gene transcripts to promote breast cancer brain metastasis. Cancer Cell. 2020;38(6):857-71.e7.
- Liu Z et al. YTHDF3 mediates the occurrence and development of breast cancer by regulating glycolysis through the mTOR-HIF1α-LDHA axis. J Cell Mol Med. 2026;30(9):e71105.
- Xu L et al. YTHDF3 promotes breast cancer osteolytic bone metastasis by enhancing the translation of ZEB1 and SMAD5. Oncogenesis. 2025;14(1):41.
- Zhang Y, Chen S, Wu Q. The m6A reader YTHDF3 promotes TNBC progression by regulating CENPI stabilization. Front Oncol. 2025;15:1546723.
- Chen H et al. YTHDF3 drives tumor growth and metastasis by recruiting eIF4B to promote Notch2 translation in breast cancer. Cancer Lett. 2025;614:217534.
- Luo Y et al. piR-1170 drives brain metastasis and immune evasion via WTAP-mediated m6A methylation reprogramming in triple-negative breast cancer. Mol Cancer. 2026;25(1):52.
- Zhang C et al. POP1 facilitates proliferation in triple-negative breast cancer via m6A-dependent degradation of CDKN1A mRNA. Research (Wash D C). 2024;7:0472.