Deze studie integreert perioperatieve anesthesie-gerelateerde drug-target-genen met multi-omics data van eierstokkanker om een prognostisch model te bouwen en te valideren en om geassocieerde immuun-, spatiale en regulatoire kenmerken te karakteriseren.
Onderzoeksartikel
Prognostische modellering van eierstokkanker op basis van perioperatieve anesthesiegerelateerde drugtargetgenen: een bio-informatische benadering
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
De heterogeniteit van eierstokkanker (OV) vormt een aanzienlijke uitdaging voor de classificatie van ziektesubtypen, risicostratificatie en precisiebeheer in de klinische praktijk. Daarom is in deze studie een prognostisch model ontwikkeld op basis van perioperatieve anesthesie-gerelateerde drug target-genen (PARDTGs) om de klinische significantie van PARDTGs bij patiënten met OV vast te stellen. Deze studie analyseerde PARDTGs bij OV uitgebreid door multi-omics data te integreren, waaronder bulk transcriptomische data, single-cell RNA-sequencing (scRNA-seq) data en ruimtelijke transcriptomische data. Op basis van de expressiekenmerken van PARDTGs hebben we een prognostische feature ontwikkeld met behulp van een stepAIC Cox proportional hazards-model. Dit model werd gebouwd op de TCGA-OV dataset en gevalideerd met de datasets GSE26193, GSE30161 en GSE63885. Verder hebben we nomogrammen geconstrueerd waarin PARDTG-kenmerken en klinische factoren werden gecombineerd. We analyseerden de correlatie tussen risicoscores en functionele verrijking, signaleringspaden en de immuunmicro-omgeving van de tumor. We identificeerden 17 PARDTGs die sterk geassocieerd zijn met de prognose van OV. De prognostische signature, gevalideerd over de cohorten TCGA-OV, GSE26193, GSE30161 en GSE63885, vertoonde een robuuste voorspellende nauwkeurigheid voor OS. Vergeleken met de gene signature alleen, vertoonde het nomogram dat het prognostische model en klinische parameters integreerde een verbeterde prognostische prestatie. Daarnaast onthulde analyse van de tumormicro-omgeving een significante verrijking van immuungerelateerde paden en lagere TIDE-scores bij patiënten met een laag risico, wat aantoont dat deze patiënten mogelijk meer baat hebben bij immunotherapie. De studie demonstreert zowel de prognostische relevantie als het klinische nut van PARDTGs bij eierstokkanker. Het integreren van genetische kenmerken in klinische tests biedt perspectief voor het verbeteren van de klinische behandeling en prognose.
Inleiding
OV is een veelvoorkomende en agressieve maligniteit die wordt gekenmerkt door sluipende initiële symptomen, een sterke invasiviteit en aspecifieke vroege klinische tekenen. Studies hebben aangetoond dat de meeste patiënten bij diagnose al in een laat klinisch stadium verkeren, met een totale vijfjaarsoverlevingskans van minder dan 45%1. Ondanks vorderingen in chirurgie, chemotherapie en gerichte therapieën blijven uitdagingen zoals tumorrecidieven, chemorésistentie en immuunontwijking bestaan, wat de therapeutische effectiviteit beperkt2. Daarom is het identificeren van nieuwe moleculaire biomarkers en het ontwikkelen van robuuste instrumenten voor risicobeoordeling dringend noodzakelijk om tumorheterogeniteit aan te pakken en gepersonaliseerde klinische strategieën te ondersteunen.
Chirurgische resectie en perioperatieve begeleiding blijven de hoeksteen van de behandeling van OV. Er is echter een groeiende hoeveelheid bewijs dat perioperatieve fysiologische stress, inflammatoire responsen en immuunmodulatie het biologische gedrag kunnen beïnvloeden en daarmee de langetermijnprognose kunnen beïnvloeden3. Als een essentieel onderdeel van de perioperatieve interventie reiken de effecten van anesthetica verder dan de onderdrukking van het centrale zenuwstelsel. Huidige studies wijzen uit dat anesthesietechnieken en anesthetica neuroendocriene responsen, inflammatoire cascades en de activiteit van immuun-effectorcellen kunnen moduleren, waardoor de postoperatieve tumormicro-omgeving wordt hervormd en het migratiepotentieel van tumorcellen, de immuunsurveillance en metastase-gerelateerde processen worden beïnvloed4. Opmerkelijk is dat specifieke anesthetica het lot van tumorcellen direct veranderen: propofol verhoogt de overleving van circulerende tumorcellen via Nrf2-gemedieerde onderdrukking van ferroptose, waardoor metastase wordt bevorderd5. Ketamine induceert ferroptose in hepatocellulaire carcinoomcellen door de lncPVT1/miR-214-3p/GPX4-as te reguleren, wat suggereert dat anesthetica de bepaling van het lot van tumorcellen direct kunnen beïnvloeden6. Daarnaast kunnen benzodiazepinen, als positieve allosterische modulatoren van GABA-receptoren, de antitumor-effectiviteit van chemo-immunotherapeutische combinaties verminderen7. Het huidige onderzoek richt zich echter voornamelijk op enkelvoudige anesthetica, waardoor een systematisch onderzoek naar hun potentiële effecten op het niveau van het gen-targetnetwerk ontbreekt.
Perioperatieve anesthesiegerelateerde drug-target genen (PARDTGs), als directe moleculaire substraten van anesthetische werking, participeren in verschillende belangrijke signaleringspaden, waaronder de regulatie van neurotransmitterreceptoren, het behoud van calciumhomeostase, actin-cytoskeletdynamiek en feedback in de endocriene stressas8,9. Onder perioperatieve chirurgische stress kunnen deze paden worden geactiveerd of onderdrukt, wat de polarisatie van immuuncellen en de remodellering van de tumorgeassocieerde microomgeving beïnvloedt8,10. Echter, bij OV blijven het expressielandschap, de functionele kenmerken en de klinische relevantie van PARDTGs onvoldoende gekarakteriseerd. Tegelijkertijd heeft de opkomst van scRNA-seq en ruimtelijke transcriptomics genexpressieprofielering op cellulaire resolutie met ruimtelijke lokalisatie mogelijk gemaakt, wat nieuwe perspectieven biedt op de ruimtelijke distributie, micro-omgevingsvoorkeuren en cel-specifieke effecten van anesthetische targetgenen in tumorweefsels11.
In deze studie hebben we PARDTGs geïntegreerd met OV multi-omics datasets, systematisch differentiële tot expressie gekomen genen geïdentificeerd en een generaliseerbaar prognostisch risicomodel geconstrueerd. We hebben verder de biologische basis van risicostratificatie geanalyseerd vanuit de perspectieven van immuuninfiltratie, stamcelkenmerken, mutationele landschappen en functionele pathways. Door multimodale sequentiedata te combineren, hebben we celtype-oorsprongen en ruimtelijke ecologische niches beschreven, miRNA/transcriptiefactor-regulerende netwerken geconstrueerd en pan-kankervalidatie uitgevoerd om de cross-tumorale significantie aan te tonen. Dit werk biedt mechanistische bewijzen voor het begrijpen van de potentiële rol van anesthetische target-netwerken bij OV en biedt translationele implicaties voor klinische risicostratificatie, prognostische voorspelling en perioperatieve managementstrategieën.
Protocol
Gegevensverzameling
We hebben 120 genen die coderen voor drugstargets gerelateerd aan perioperatieve anesthesie gescreend op basis van eerdere literatuur12 en deze vermeld in Supplementary Table S1. Vervolgens zijn genexpressieprofielen, klinische informatie en overlevingsgegevens verkregen uit de UCSC Xena TCGA TARGET GTEx Toil recompute-bron (http://xena.ucsc.edu/). De expressiedataset bestond uit 420 primaire ovariale sereuze cystadenocarcinoommonsters van The Cancer Genome Atlas (TCGA-OV) en 88 normale eierstokmonsters van het Genotype-Tissue Expression (GTEx)-project. Genexpressiewaarden werden verkregen als RSEM gen-niveau FPKM-waarden gegenereerd door de Toil-pipeline13. Een gedetailleerde beschrijving van de monsterstroom, die de inclusie van TCGA-monsters voor elke downstream-analyse illustreert, is opgenomen in Supplementary Table S2. Daarnaast hebben we voor externe validatie de datasets GSE2619314 (n = 107 monsters), GSE3016115 (n = 58 monsters) en GSE6388516(n = 70 monsters) gedownload uit de GEO-database (http://www.ncbi.nlm.nih.gov/geo/) om de genexpressieprofielen en overleving van de bijbehorende patiënten te analyseren. Om dataconsistentie te waarborgen, werden ENSEMBL-genidentificatoren omgezet naar officiële gensymbolen. Genen met expressie in minder dan de helft van de monsters werden gefilterd. Daarnaast hebben we de human ovarian cancer single-cell transcriptoomdataset GSE15460017 en de ovarian cancer spatiale transcriptoomdataset GSE211956-GSM6506110-SP118 verkregen uit de GEO-database.
Verwerking van ruimtelijke transcriptoomsequentiegegevens van eierstokkanker
Ruimtelijke transcriptomische gegevens werden verwerkt met Seurat19 (versie 5.4.0). Spots werden gefilterd aan de hand van dezelfde kwaliteitscontrolecriteria als bij de analyse van single-cell RNA-sequencing (nFeature_RNA: 200–5.000; percentage mitochondriale genen < 10%). Na normalisatie en identificatie van sterk variabele genen werd een PCA-gebaseerde dimensionaliteitsreductie uitgevoerd, en de clustering werd uitgevoerd met het grafiekgebaseerde clusteringalgoritme van Seurat. Subgroepen en genexpressiepatronen werden gevisualiseerd met de functie SpatialFeaturePlot. Daarnaast werden genexpressieniveaus op het niveau van het ruimtelijke transcriptoom gevisualiseerd en geanalyseerd met "AUCell"19 (versie 1.32.0).
scRNA-seq data-analyse
Single-cell RNA-sequencinggegevens van GSE154600 werden geanalyseerd met het Seurat-pakket (versie 5.4.0)19. Cellen van lage kwaliteit werden verwijderd op basis van kwaliteitscontrolecriteria. Cellen met minder dan 200 of meer dan 5.000 gedetecteerde genen, of mitochondriale genproporties die 10% overschreden, werden uitgesloten. Na normalisatie met de NormalizeData-functie werden de 2.000 meest variabele genen geïdentificeerd met de VST-methode. Er werd een PCA uitgevoerd op basis van de variabele genen, waarbij de eerste 15 hoofdcomponenten werden gebruikt voor clustering en dimensiereductie. Celclusters werden geïdentificeerd met FindNeighbors en FindClusters met een resolutie van 0,5, gevolgd door UMAP- en t-SNE-visualisatie. De FindAllMarkers-functie werd gebruikt om markergenen voor verschillende celclusters te identificeren. Daarnaast hebben we de celclusters geannoteerd met de CellMarker 2.020-database en een kwantitatieve analyse van de genactiviteit uitgevoerd met de ssGSEA-functie van het GSVA-pakket (versie 2.4.9).
Analyse van differentieel tot expressie gebrachte genen (DEG) en functionele analyse
De analyse van differentiële expressie werd uitgevoerd met het “limma”-pakket21 (versie 3.56.2) op basis van de expressieprofielen van PARDTGs in eierstokkanker en normaal eierstokweefsel. Voorafgaand aan de analyse werden de FPKM-expressiewaarden log2-getransformeerd met de formule log2(FPKM+1). Het standaard lineaire model dat is geïmplementeerd in het limma-pakket werd toegepast om differentieel tot expressie gebrachte PARDTGs te identificeren. Genen met een false discovery rate (FDR) < 0,05 en een |log2 fold change (FC)| > 1 werden beschouwd als significant differentieel tot expressie gebracht. GO- en KEGG-verrijking werden uitgevoerd op de differentieel tot expressie gebrachte PARDTGs met behulp van ClusterProfiler22 (versie 4.8.3). Waterfall plots werden gegenereerd met “maftools”23 (versie 2.16.0) om somatische mutaties in PARDTGs bij eierstokkanker te detecteren. Vervolgens werd het PPI-netwerk van PARDTGs opgezet met de STRING-repository (versie 12.0) met standaardparameters.
Ontwikkeling van een risicoscoringssysteem op basis van PARDTG
Om de optimale PARDTGs te identificeren, werd een stapsgewijze Cox proportional hazards regressieanalyse uitgevoerd om prognostisch significante genen te screenen onder de differentieel tot expressie gebrachte PARDTGs en om hun bijdrage aan de algehele overleving bij eierstokkanker (OV) te bepalen. De aanname van proportionele risico's van het uiteindelijke multivariate Cox-regressiemodel werd beoordeeld met Schoenfeld-residutests, geïmplementeerd in de cox.zph-functie van het R survival-pakket (versie 3.5.5). Een prognostische risicoscore werd berekend op basis van de expressieniveaus van de kenmerkende genen en hun bijbehorende Cox-regressiecoëfficiënten. Gegeven de heterogeniteit tussen transcriptomische platforms, werden de prognostische modellen onafhankelijk geëvalueerd in de TCGA-OV, GSE26193, GSE30161 en GSE63885 cohorten. Voor elk cohort werden de expressieprofielen van de kenmerkende genen gebruikt om cohortspecifieke risicoscores te berekenen, en patiënten werden gestratificeerd in categorieën met een hoog en laag risico, waarbij de mediane risicoscore als afkapwaarde diende. De algehele overleving (OS) werd tussen de twee groepen vergeleken met behulp van Kaplan-Meier-analyse, waarbij de statistische significantie werd beoordeeld met de log-rank-test. De onafhankelijke prognostische waarde van de risicoscore werd vervolgens beoordeeld via zowel univariate als multivariate Cox proportional hazards regressieanalyses.
Ontwikkeling van een prognostisch klinisch model voor eierstokkanker
Om vast te stellen of de risicoscore prognostische informatie bood naast conventionele klinische variabelen, werden univariate en multivariate Cox proportional hazards regressieanalyses uitgevoerd, waarbij de risicoscore samen met clinicopathologische kenmerken werd opgenomen. Vervolgens werden prognostische nomogrammen geconstrueerd met de moleculaire risicoscore en klinisch relevante variabelen, zoals tumorstadium en graad, als inputparameters. Variabelen werden geselecteerd op basis van hun klinische relevantie en het doel om een geïntegreerd prognostisch model te ontwikkelen, in plaats van uitsluitend op basis van statistische significantie. Nomogrammen werden gegenereerd met behulp van het “rms” pakket24 (versie 6.7.1) om de overlevingskansen voor 1, 3 en 5 jaar te schatten op basis van totale scores afgeleid van individuele variabelen.
Karakterisering van immuuneigenschappen
Immuuncelinfiltratie werd geschat met behulp van het CIBERSORT-algoritme met de LM22-signatuurmatrix. De analyse werd uitgevoerd met 1.000 permutaties, waarbij monsters met een deconvolutie-P-waarde < 0,05 als statistisch betrouwbaar werden beschouwd. Watervaldiagrammen werden gegenereerd met maftools (versie 2.16.0) om de prevalentie van sterk gemuteerde genen bij eierstokkanker te illustreren. Gene set enrichment analysis (GSEA) werd uitgevoerd via ClusterProfiler (versie 4.8.3) met een significantiedrempel van p < 0,05.
Constructie van een ceRNA-netwerk
In deze studie werd NetworkAnalyst 3.0 (https://www.networkanalyst.ca/)25 gebruikt om de interactie tussen prognostische genen en transcriptiefactoren te analyseren. Het miRNA-TF co-regulerend netwerk werd geconstrueerd met behulp van NetworkAnalyst 3.0.
Weefselmonsters van eierstokkanker
Weefsels van eierstokcarcinomen en bijbehorende aangrenzende normale monsters (N = 6) werden verzameld van patiënten die een electieve chirurgische resectie ondergingen. Het studieprotocol werd goedgekeurd door de ethische commissie van het Obstetrics & Gynecology Hospital van de Fudan Universiteit (2024-54-X1), en van alle deelnemers is schriftelijke geïnformeerde toestemming verkregen. Deze studie werd uitgevoerd in overeenstemming met de Verklaring van Helsinki.
Western blot-analyse
Totaaleiwit werd geëxtraheerd uit menselijke weefselmonsters met behulp van RIPA-lysisbuffer die fenylmethylsulfonylfluoride (PMSF), een protease-remmercocktail en fosfataseremmers bevatte. Eiwitconcentraties werden gemeten met een bicinchonininezuur (BCA) eiwitassay. Gelijke hoeveelheden eiwit werden gescheiden via SDS-polyacrylamidegelelektroforese (SDS-PAGE) alvorens ze werden overgebracht op polyvinylideenfluoride (PVDF) membranen. Na de overdracht werden de membranen gedurende 90 min bij kamertemperatuur geblokkeerd met 5% vetvrije melk bereid in TBS-T. De membranen werden vervolgens overnight bij 4 °C geïncubeerd met primaire antilichamen tegen Cytokeratin 81 (konijn polyklonaal, 1:2.000) of GAPDH (muis monoklonaal, 1:10.000). Na het wassen werden de geschikte secundaire antilichamen gedurende 90 min bij kamertemperatuur toegevoegd. Eiwitbanden werden gevisualiseerd met behulp van een enhanced chemiluminescence (ECL) detectiereagens en vastgelegd met een commercieel imagesysteem. Densitometrische analyse werd uitgevoerd in ImageJ, en de expressie van KRT81 werd genormaliseerd ten opzichte van de GAPDH-laadcontrole. Verschillen in eiwitexpressie tussen gepaarde monsters werden geëvalueerd met een gepaarde t-toets, waarbij P < 0,05 als statistisch significant werd beschouwd.
Pan-canceranalyse
In deze studie werd TCGAplot26 (versie 5.0.0) gebruikt om de relaties tussen de expressieniveaus van KRT81 te identificeren. De Pearson-correlatieanalyse werd aangewend om statistische correlaties te berekenen. Het mutatieprofiel van KRT81 in diverse kankersoorten werd onderzocht met behulp van het cBioPortal-platform (http://www.cbioportal.org/) (versie 7.0.6).
Statistische analyses
Alle data-analyses werden uitgevoerd met R-software (versie 4.3.1). Vergelijkingen tussen twee groepen werden uitgevoerd met de Wilcoxon rank-sum test, terwijl verschillen tussen drie of meer groepen werden geëvalueerd met de Kruskal-Wallis-test. De algehele overleving werd geanalyseerd met de Kaplan-Meier-methode en de statistische significantie tussen overlevingscurves werd bepaald met de log-rank-test. Tenzij anders aangegeven, werd een tweezijdige P-waarde < 0,05 als statistisch significant beschouwd. Significantieniveaus worden als volgt aangeduid: P < 0,05 *, P < 0,01 **, P < 0,001 *** en P < 0,0001 ****.
Resultaten
Immuunkarakteristieken van perioperatieve anesthetica-gerelateerde targetgenen in spatiale en single-cell transcriptomische analyses
SCTransform werd gebruikt om de sequencingdiepte te corrigeren en de geïmplementeerde procedures uit te voeren, wat uiteindelijk leidde tot de identificatie van 11 verschillende celtypen. Om het belang van doelwitgenen van perioperatieve anesthesiegerelateerde geneesmiddelen (PARDTGs) in elke celsubpopulatie te beoordelen, gebruikten we het AUCell R-pakket om de PARDTG-gerelateerde activiteiten in elke celsubpopulatie te bepalen (Figuur 1A,B). Vervolgens berekenden we de correlatie tussen celabundantie en PARDTG-geassocieerde activiteiten over alle loci met behulp van de rangcorrelatie van Spearman. Opvallend was dat PARDTG-gerelateerde activiteiten negatief correleerden met tumorcellen (Figuur 1C). We verkregen single-cell RNA-sequencinggegevens van 5 OV-patiënten, bestaande uit in totaal 41.367 cellen. Op basis van de expressie van markergenen werden de cellen gecategoriseerd in 11 hoofdclusters (Figuur 1D). De interactienetwerken en de sterkte hiervan voor het celtype worden weergegeven in Figuur 1E. We evalueerden de PARDTG-activiteit in alle individuele cellen door de expressie van 120 PARDTGs te scoren met behulp van ssGSEA in Seurat (Figuur 1F). Opvallend genoeg vertoonden tumorcellen een aanzienlijk lagere activiteit dan alle andere celtypen (Figuur 1G).
Identificatie en moleculaire karakterisering van perioperatieve anesthesiegerelateerde drug-targetgenen bij eierstokkanker
Uit de TCGA-database hebben we 68 differentieel tot expressie gebrachte PARDTGs geïdentificeerd, welke worden weergegeven in Figuur 2A (zie ook Aanvullende Tabel S3). Figuur 2B beschrijft de expressie van deze 68 perioperatieve anesthesie-geassocieerde DEGs in de TCGA-OV-cohort. Vervolgens hebben we een PPI-netwerk geconstrueerd om de complexe relaties tussen proteïnen geassocieerd met DEGs te verduidelijken. We hebben vijf potentiële hub-genen geïdentificeerd—SLC6A4, CHRNA4, DRD2, SLC6A3, en GRIN2A—die belangrijke effecten kunnen hebben op de pathogenese van eierstokkanker (Figuur 2C). Daarnaast hebben we het moleculaire alteratieprofiel van 120 PARDTGs bij eierstokkanker onderzocht, waarbij nonsense-mutaties het meest voorkomende varianttype waren (Figuur 2D). De meest frequent gemuteerde genen waren SCN10A, DNMT1, GRIN2A, LTF, en SCN11A. We hebben de prevalentie van copy number variation (CNV)-mutaties geëxploreerd, en de resultaten onthulden dat de top 20 PARDTGs met mutaties significante CNV-alteraties vertoonden (Figuur 2E). GO- en KEGG-verrijking wees uit dat PARDTGs geassocieerd zijn met neuroactieve ligand-signalering, calcium-signaleringspaden, hormoonsignalering, amfetamineverslaving, cocaïneverslaving en neuroactieve ligand-receptorinteracties (Figuur 2F,G).
Constructie en validatie van een prognostisch model op basis van perioperatieve anesthesiegerelateerde drug-targetgenen
Om de complexiteit van het model te minimaliseren, is StepAIC gebruikt om de genenset te reduceren, waarbij uiteindelijk 17 PARDTGs zijn behouden voor de constructie van het prognostisch model (Aanvullende Tabel S4). De globale Schoenfeld-residuenanalyse toonde geen significante afwijking van de proportional hazards-aanname (p = 0,265), wat de betrouwbaarheid van het prognostisch model met 17 genen ondersteunt. De risicoscore werd berekend met de volgende vergelijking: risicoscore = ADRA1D*(0,4452) + ADRB1*(-0,5347) + CHRNA4*(0,3495) + DBH*(-0,5765) + EPHA4*(0,2827) + EPHA7*(-0,5707) + EPHA8*(0,8765) + GABRB2*(0,5979) + GRIN2A*(-0,1750) + GRIN2D*(0,2746) + KCNA1*(2,2753) + KRT81*(0,1101) + OPRD1*(-3,2372) + SLC6A2*(1,4901) + SLC18A1*(4,2170) + SLC18A2*(-1,4600) + CHRNA1*(-0,1723). Patiënten werden vervolgens ingedeeld in categorieën met een laag en een hoog risico op basis van hun risicoscores, waarbij de groep met een laag risico een significant verbeterde OS vertoonde in vergelijking met de groep met een hoog risico in de TCGA-OV (Figuur 3A, p < 0,0001), de GSE26193-cohort (Figuur 3B, p = 0,00021), de GSE30161-cohort (Figuur 3C, p = 0,0017) en de GSE63885-cohort (Figuur 3D, p = 0,0041). Bovendien illustreren Figuur 3E–H de distributies van de overlevingsstatus en risicoscores over de TCGA-OV-, GSE26193-, GSE30161- en GSE63885-cohorten, wat onafhankelijk bewijs levert voor de stabiliteit en voorspellende betrouwbaarheid van het prognostisch model bij OV.
Opstelling en evaluatie van een overlevingsmodel op basis van een nomogram
Zowel univariaate als multivariaate Cox-regressieanalyses toonden aan dat de risicoscore fungeerde als een onafhankelijke voorspeller voor de prognose bij patiënten met eierstokkanker (Figuur 4A,B). De verdeling van de genexpressie van het model, de bijbehorende risicoscores en de clinicopathologische kenmerken in de TCGA-OV-cohort worden geïllustreerd in Figuur 4C. Om de klinische toepasbaarheid te verbeteren, werd een prognostisch nomogram opgesteld waarin de risicoscore samen met leeftijd, tumorstadium en graad werd opgenomen om de algehele overleving (OS) te schatten (Figuur 4D). In vergelijking met de genhandtekening alleen, behaalde het geïntegreerde nomogram superieure voorspellende prestaties. Overlevingsanalyse toonde verder een significant langere OS aan in de lage-risicogroep dan in de hoge-risicogroep (Figuur 4E; P < 0.0001). Het gecombineerde model leverde tijdsafhankelijke AUC-waarden op van 0.769, 0.690 en 0.728 voor de voorspelling van OS (Figuur 4F). Decision curve-analyse ondersteunde het potentiële klinische nut van het nomogram door een groter netto voordeel aan te tonen over een reeks drempelwaarschijnlijkheden (Figuur 4G). Bovendien wezen kalibratieplots op een nauwe overeenstemming tussen de voorspelde en waargenomen overlevingskansen, wat duidt op een goede modelkalibratie (Figuur 4H). Collectief geven deze resultaten aan dat het voorgestelde nomogram over een sterke voorspellende capaciteit beschikt voor het beoordelen van de prognose van patiënten met OV.
Associatie van het PARDTG-gebaseerde prognostische model met immuuninfiltratie en de immuunmicro-omgeving van de tumor
Om de immuuninfiltratie te karakteriseren, werd de abundantie van immuuncellen in de monsters gekwantificeerd. Zeventien genen werden geïdentificeerd als significant geassocieerd met tumor-infiltrerende immuuncellen, waaronder ADRA1D, KCNA1 en SLC18A2, die positieve correlaties vertoonden met M2-macrofagen (Figuur 5A). Vervolgens hebben we de cellulaire lokalisatiepatronen van deze genen onderzocht. Dot plot-analyse onthulde dat KRT81 voornamelijk tot expressie kwam in CD8Tex- en Tprolif-cellen, terwijl de expressie van EPHA4 hoofdzakelijk verrijkt was in endotheelcellen en fibroblasten, wat suggereert dat zij mogelijk betrokken zijn bij verschillende cellulaire compartimenten binnen de tumormicro-omgeving (Figuur 5B). Daarnaast hebben we de TIDE-scores van patiënten geëvalueerd en waargenomen dat de high-risk subcluster hogere TIDE-scores en een positieve correlatie vertoonde (Figuur 5C). Bovendien waren de stemness enrichment scores significant hoger in de high-risk groep dan in de low-risk groep (Figuur 5D). Somatische mutatieanalyse onthulde een hoge algemene mutatiefrequentie in beide risicogroepen (Figuur 5E,F). Hiervan waren de mutatiefrequenties van CSMD3 en MUC16 hoger in high-risk monsters.
GSEA onthulde dat immuungerelateerde pathways, waaronder antigeenverwerking en -presentatie en allotransplantatafstoting, significant verrijkt waren in de laag-risicogroep, terwijl pathways geassocieerd met tumorinvasie en motiliteit, zoals regulatie van het actinecytoskelet, proteoglycanen bij kanker en motorproteïnen, voornamelijk verrijkt waren in de hoog-risicogroep (Figuur 5G,H). Deze bevindingen suggereren dat patiënten in de hoog-risicogroep mogelijk een beperkte respons vertonen op immunotherapie.
Identificatie en netwerkanalyse van prognostische PARDTGs bij eierstokkanker
Om het mechanisme te verduidelijken, hebben we 490 miRNA's en 17 potentiële regulerende netwerken van biomarkers geïdentificeerd (Figuur 6A). Hiervan hebben hsa-miR-27a-3p, hsa-miR-34a-5p, hsa-miR-106b-5p en hsa-miR-20b-5p het potentieel om de meeste genen te reguleren. Uiteindelijk identificeerden onze onderzoeksresultaten 37 transcriptiefactoren die de kandidaat-diagnostische genen reguleerden (Figuur 6B). Daarnaast werd vastgesteld dat FOXC1 eveneens meerdere regulerende functies heeft.
Pan-cancer analyse van KRT81-expressie
RNA-seq-gegevens van TCGA werden verkregen om de expressie van KRT81 te beoordelen. De resultaten suggereerden dat het sterk tot expressie kwam in de meeste kankers, maar op lage niveaus werd uitgedrukt in GBM, LGG, SKCM, TGCT en THCA (Figuur 7A). Om het resultaat te verifiëren dat KRT81 sterk tot expressie komt in eierstokkanker, zoals vastgesteld door bio-informatische analyse, hebben we een western blot-experiment uitgevoerd. De resultaten gaven aan dat de KRT81-expressie significant verhoogd was in tumorweefsels vergeleken met normaal weefsel en grotendeels consistent was met de TCGA-transcriptomische gegevens (Figuur 7B, Aanvullende Figuur S1 en Aanvullende Tabel S5). Om de relaties tussen KRT81 en kanker te illustreren, hebben we de genexpressie en immuuncelinfiltraties onderzocht (Figuur 7C). De analyse onthulde dat de expressie van KRT81 positief gecorreleerd was met de infiltratie van T-cellen, Tregs en M2-macrofagen in de meeste kankers. Daarnaast was de KRT81-expressie positief geassocieerd met de stromale en immuunscores in de meeste kankers (Figuur 7D). Verder hebben we de correlatie tussen de expressie van KRT81 en de aneuploïdie-score geanalyseerd, waarbij het radardiagram liet zien dat KRT81 gecorreleerd was met de aneuploïdie-score in UCEC, SARC, LUAD, LIHC en KIRP (Figuur 7E). Vervolgens analyseerden we de correlatie tussen KRT81 en tumorploidie, en het radardiagram toonde aan dat KRT81 gecorreleerd was met tumorploidie in THCA, TGCT, SARC, MESO, LIHC en CESC (Figuur 7F). Daarna liet het radardiagram zien dat KRT81 gecorreleerd was met SNV-neoantigenen in UCEC, THYM, LUAD, LIHC, GBM en BRCA (Figuur 7G). Bovendien onthulde de cBioPortal-online-analyse dat de hoogste frequentie van KRT81-genmutaties voorkwam in UCEC, waarvan de meeste typen "mutatie" en "amplificatie" waren (Figuur 7H,I). Middels univariate Cox proportional hazard regressieanalyse stelden we vast dat KRT81 een voorspeller was voor OS in KIRC, LUAD en STAD (Figuur 7J).
Beschikbaarheid van gegevens:
Openbaar beschikbare datasets die in deze studie zijn geanalyseerd, zijn verkrijgbaar via TCGA, UCSC Xena en GEO. De originele western blot-afbeeldingen en de bijbehorende kwantitatieve gegevens die tijdens deze studie zijn gegenereerd, zijn opgenomen in de aanvullende materialen (Aanvullende figuur S1 en Aanvullende tabel S5).
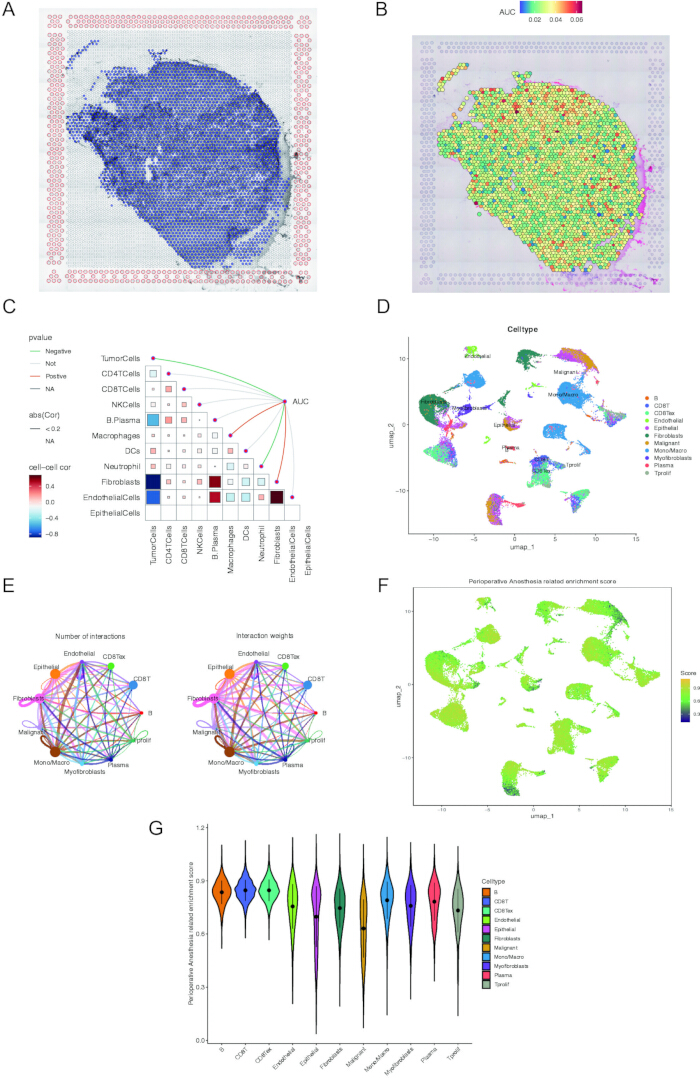
Figuur 1. PARDTG-geassocieerde kenmerken in de ruimtelijke analyse en scRNA-seq. (A,B) Ruimtelijke mapping van de expressie-intensiteit van PARDTG (C), Spearman-correlatie van de PARDTG-geassocieerde activiteit. (D) Analyse van celtypen. (E) Analyse van het aantal en de sterkte van interacties tussen celtypen. (F) De PARDTG-verrijkingswaarde in cellen. (G) De distributie van PARDTG. Afkortingen: PARDTG = perioperative anesthesia-related drug target genes; scRNA-seq = single-cell RNA sequencing. Klik hier om een grotere versie van deze figuur te bekijken.
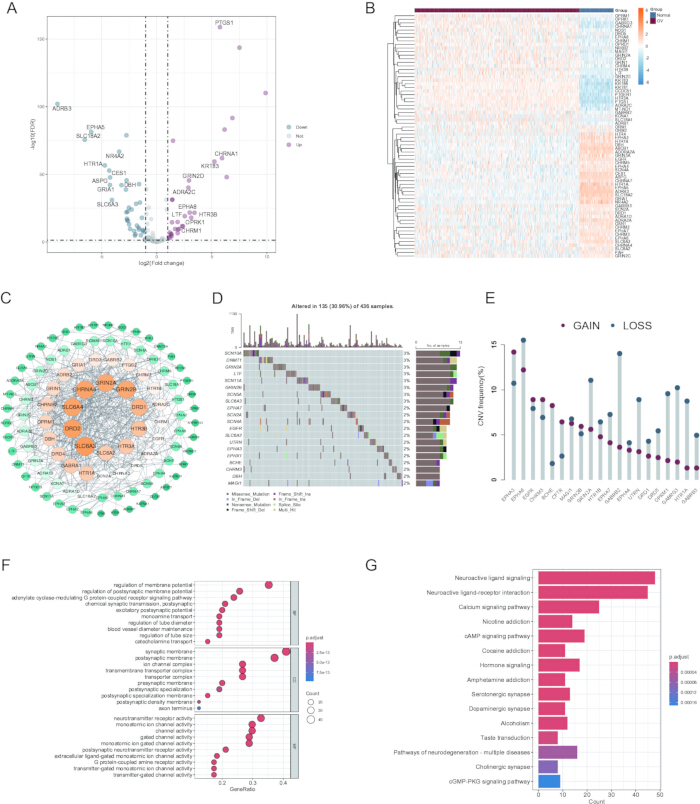
Figuur 2. Landschap van genetische alteraties van PARDTGs bij OV-patiënten. (A) Volcano-visualisatie van de DEGs in OV (blauw: down-gereguleerde DEGs; rood: up-gereguleerde DEGs; grijs: stabiele genen), FDR< 0,05 en |log2FC| > 1. (B) Heatmap die differentieel tot expressie gekomen kenmerken tussen de OV- en normale groepen illustreert. Blauw is de normale groep, rood is de OV-groep, het blauwe vierkant staat voor een lage expressie en het gele vierkant staat voor een hoge expressie. (C) PPI-netwerk van perioperatieve anesthesiegerelateerde DEGs, verkregen via de String-website. (D) De top 20 PARDTGs in de TCGA-cohort. (E) Frequenties van CNV-gain, loss en non-CNV onder de top 20 PARDTGs. (F) GO-dotplot van verrijkte GO-termen. (G) staafdiagram van verrijkte KEGG-pathways. OV = eierstokkanker; GO = Gene Ontology; KEGG = Kyoto Encyclopedia of Genes and Genomes; PPI = proteïne-proteïne interactie. Klik hier om een grotere versie van deze figuur te bekijken.
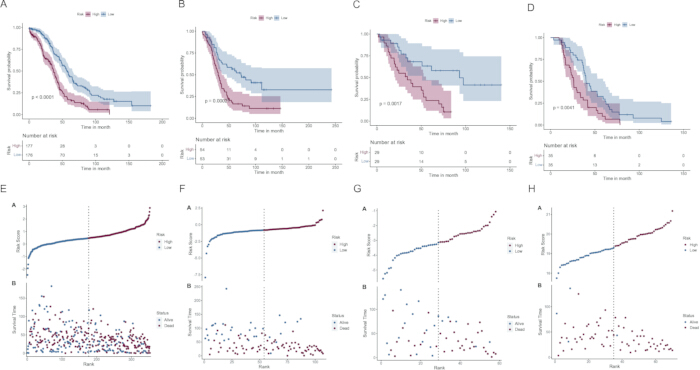
Figuur 3. Constructie en validatie van een PARDTG-gebaseerde prognostische handtekening voor eierstokkanker. (A-D). OS bij patiënten met een laag en hoog risico in (A) TCGA-OV, (B) GSE26193, (C) GSE30161, (D) GSE63885. (E-H) Distributie van de PARDTG-geassocieerde risicoscore op basis van overlevingsstatus en tijd in (E) TCGA-OV, (F) GSE26193, (G) GSE30161, (H) GSE63885. Klik hier om een grotere versie van deze figuur te bekijken.
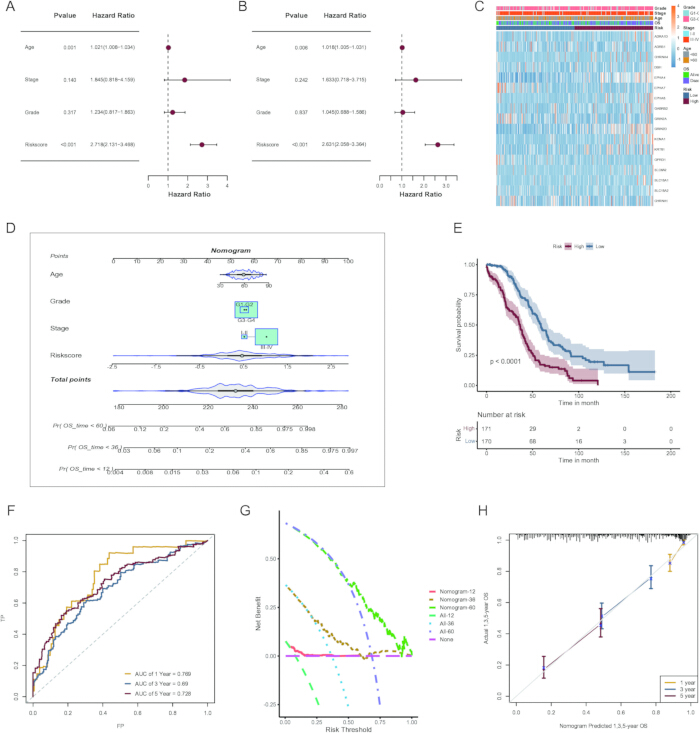
Figuur 4. Constructie en validatie van een prognostisch nomogram gebaseerd op de PARDTG-afgeleide risicosignatuur. (A,B) De clinicopathologische kenmerken en risicoscores in de TCGA-OV-cohort. (C) De distributie van klinische kenmerken en de expressie van modelgenen per risicoscore. (D) Een nomogram voor het voorspellen van de prognose bij OV-patiënten. (E) Kaplan-Meier-analyses voor twee OV-groepen. (F) ROC-curve-analyse in TCGA-OV. (G) DCA toont de netto voordelen van het nomogram en andere klinische kenmerken. (H) Kalibratieplots tonen de OS in TCGA-OV. Afkortingen: ROC = receiver operating characteristic; DCA = decision curve analysis. Klik hier om een grotere versie van deze figuur te bekijken.
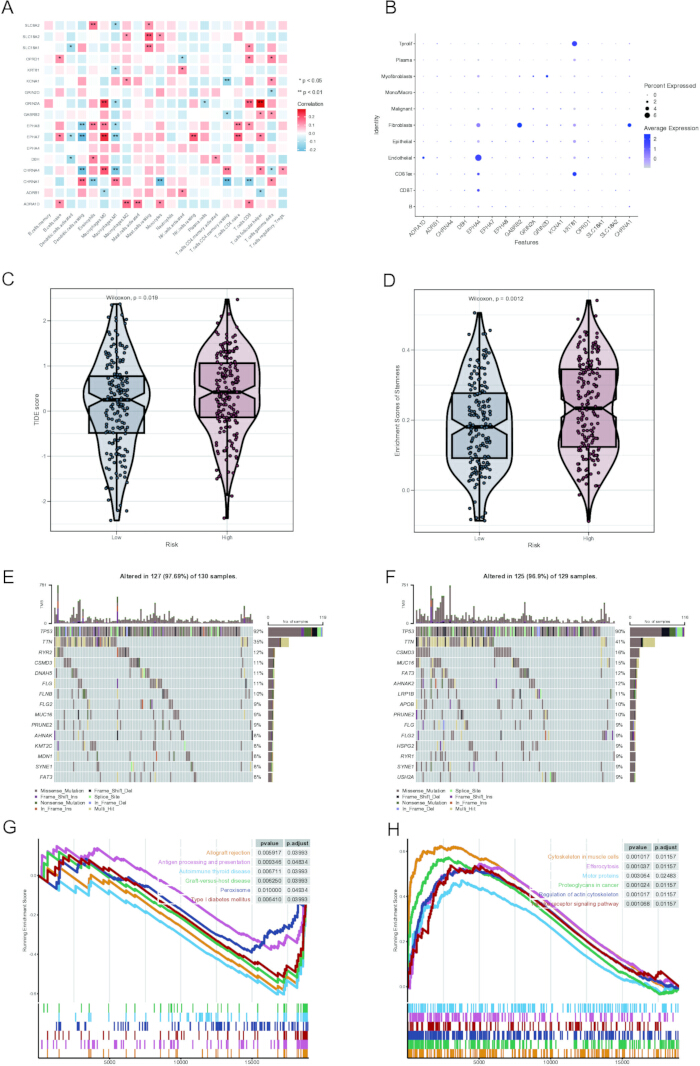
Figuur 5. Analyse van de tumor-micro-omgeving bij patiënten met een laag en hoog risico. (A) Correlatie tussen tumor-infiltrerende immuuncellen en genen in het PA-gerelateerde prognostische model. (B) Bubble plot die de gemiddelde expressie en proportie van prognostische biomarkers over verschillende cel-subtypes weergeeft. (C) Violengrafiek van TIDE-scores. (D) Violengrafiek van tumor stemness enrichment scores. (E,F) Waterfall plot die somatische mutatiekenmerken weergeeft in (E) laag-risico en (F) hoog-risico scorecategorieën. (G,H) GSEA-resultaten van KEGG-pathways in de (G) laag-risico subgroep en (H) hoog-risico subgroep. Afkortingen: TIDE = Tumor Immune Dysfunction and Exclusion; GSEA = Gene Set Enrichment Analysis. Klik hier om een grotere versie van deze figuur te bekijken.
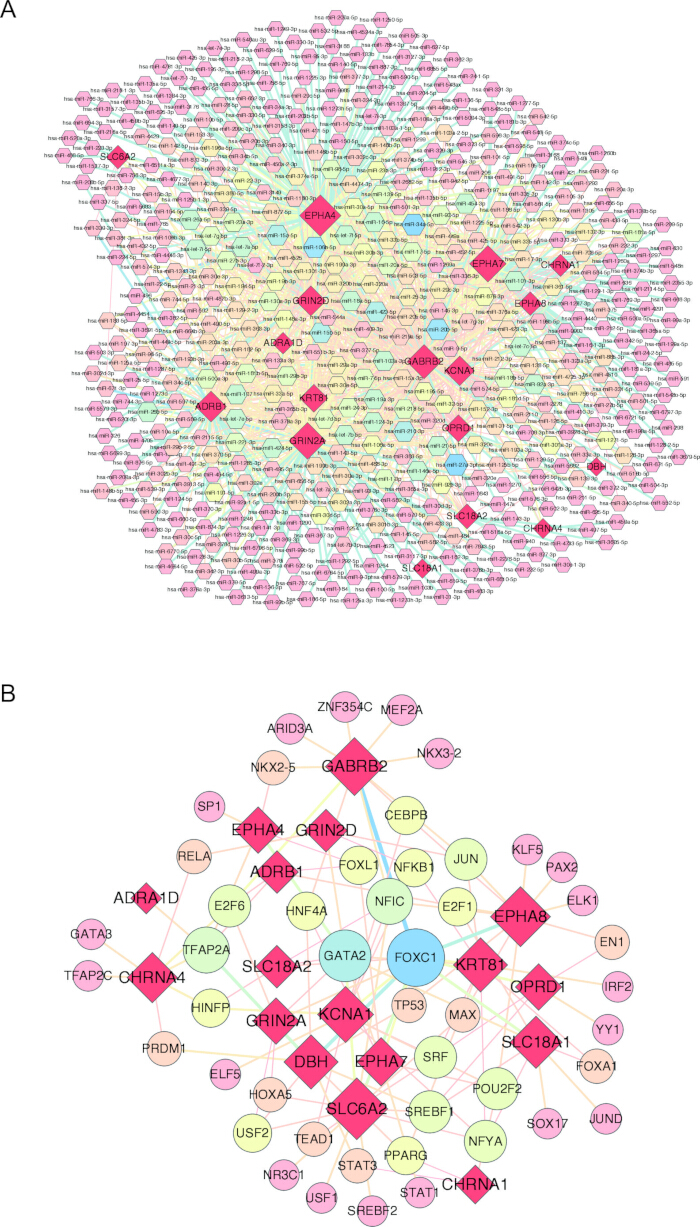
Figuur 6. Interactienetwerkanalyse van prognostische markers. (A) Coregulatorienetwerk van miRNA-prognostische markers. (B) Coregulatorienetwerk van transcriptiefactor-prognostische markers. Klik hier om een grotere versie van deze figuur te bekijken.
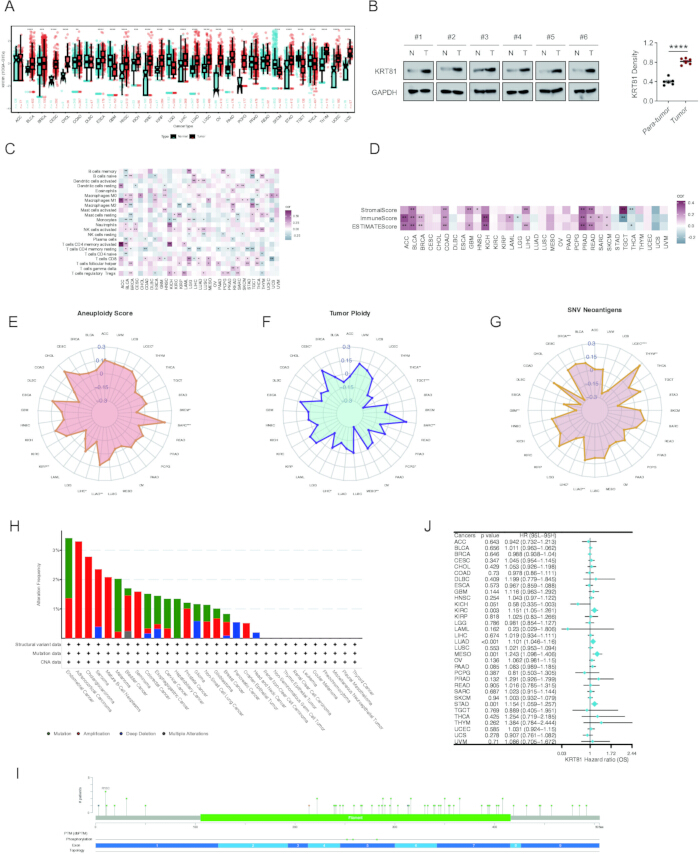
Figuur 7. Expressieniveau, immuunkenmerken en genetische alteraties van KRT81 in menselijke tumoren. (A) KRT81-expressie in TCGA-tumoren en aangrenzende weefsels. (B) Western blot-analyse van de KRT81-proteinexpressie in gepaarde aangrenzende normale weefsels en tumorweefsels van zes patiënten met eierstokkanker (n = 6). Relatieve bandintensiteiten werden genormaliseerd ten opzichte van GAPDH, en gegevens werden geanalyseerd met een gepaarde t-toets. Gegevens worden gepresenteerd als gemiddelde ± SD. (C) De correlatie tussen KRT81 en de ratio van immuuncellen wordt weergegeven door een heatmap. (D) Correlatie tussen KRT81 en immuun-, stroma- en ESTIMATE-scores, weergegeven in een heatmap. (E-G) Correlatie tussen de expressie van KRT81 en (E) Aneuploidy Score, (F) Tumor Ploidy, (G) SNV Neoantigens in TCGA-databases. (H) KRT81-mutaties in verschillende kankertypes uit de cBioPortal-database. (I) Distributie van KRT81-mutatieplaatsen in pan-cancer. (J) Een pan-cancer Cox-regressieanalyse van KRT81 over TCGA-kankers. *p < 0.05; ***p < 0.001; ****p < 0.0001. Afkortingen: SNV = Single Nucleotide Variant; N = normaal; T = tumor. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende Tabel S1: Perioperatieve anesthesie-gerelateerde drug target-genen. Klik hier om dit bestand te downloaden.
Aanvullende Tabel S2: Beschrijving van de monsterstroom.Klik hier om dit bestand te downloaden.
Aanvullende Tabel S3: Differentieel tot expressie gebrachte genen die doelwitten zijn voor perioperatieve anesthetica. Klik hier om dit bestand te downloaden.
Aanvullende tabel S4: Prognostische perioperatieve anesthesiegerelateerde drug-target genen.Klik hier om dit bestand te downloaden.
Aanvullende tabel S5: Brongegevens van de Western blot.Klik hier om dit bestand te downloaden.
Aanvullende figuur S1: Originele data van western blotting.Klik hier om dit bestand te downloaden.
Discussie
Als een onvermijdelijk onderdeel van workflows voor kankerbehandeling heeft perioperatieve anesthesie toenemende aandacht gekregen vanwege de potentiële immunomodulerende effecten, het vermogen tot remodellering van de micro-omgeving en de mogelijke bevordering van tumordisseminatie. Nu kanker steeds vaker wordt erkend als een systemische en ecologische ziekte in plaats van een strikt door genen gedreven focale laesie27, kunnen perioperatieve fysiologische dysregulatie, inflammatoire responsen en metabole stress micro-omgevingsniches hervormen en de evolutionaire trajecten van tumoren beïnvloeden. Door middel van multi-layer transcriptoomintegratie heeft deze studie systematisch de expressiepatronen, biologische associaties en prognostische waarde van PARDTGs in OV beschreven, wat potentiële aanwijzingen biedt voor perioperatieve precisie-anesthesie.
Ruimtelijke en single-cell transcriptomische profilering wezen op een uitgesproken ruimtelijke variatie in de PARDTG-activiteit, waarbij een afname van de activiteit werd gezien in tumor-epitheelcellen en een toename in immuun-, endotheel- en fibroblastcellen. Dit patroon van "verrijking in niet-tumorcellen" suggereert dat het netwerk van het anesthetische doelwit zijn effecten mogelijk primair uitoefent door de toestanden van stromale cellen en immuuncellen te moduleren, in plaats van via directe intrinsieke mechanismen in tumorcellen. Deze observatie sluit aan bij het concept dat tumorprogressie gezamenlijk wordt gevormd door tumorcellen en hun gastmicro-omgeving28. Opmerkelijk is dat door chirurgie geïnduceerde acute inflammatie, transiënte immunosuppressie en weefselremodellering een kortstondige wondgenezingsmicro-omgeving kunnen creëren die tumoren kunnen exploiteren om het risico op disseminatie en recidive te verhogen29.
Verdere analyse van de TCGA-cohort identificeerde 68 differentieel tot expressie gekomen PARDTGs die significant verrijkt waren in neuroactieve ligand-receptorinteracties, calciumsignalering en verslavingsgerelateerde pathways. Het geconstrueerde PPI-netwerk highlightte verschillende hub-genen gerelateerd aan neurotransmissie-transporters en receptoren, zoals DRD2, SLC6A3 en SLC6A430, wat wijst op additionele regulatoire input van perioperatieve neurotransmittersignalering bij de progressie van OV. Recent werk demonstreerde dat de DRD2-antagonist ONC206 proliferatie en invasie in OV-cellen en transgene muismodellen onderdrukt door celcyclusarrest en apoptose te induceren, wat het therapeutische potentieel van deze as benadrukt. CHRNA4 en GRIN2A coderen respectievelijk voor cholinerge receptor- en NMDA-receptorgerelateerde eiwitten; activatie van deze receptoren faciliteert de intracellulaire Ca2⁺-instroom31,32, terwijl calciumperturbatie het cytoskelet kan remodelleren en tumor-bevorderende transcriptionele programma's kan activeren33. Daarnaast zijn verslavingsgeassocieerde receptoren (bijv. µ-opioïdreceptoren) gekoppeld aan mTORC1-activatie en immuunontwijking34. Collectief suggereren deze bevindingen potentiële crosstalk tussen anestheticum-doelpaths en het perioperatieve stress-neuro-immuunnetwerk, waardoor de tumorplasticiteit en het risico op recidive binnen een kort perioperatief venster worden beïnvloed.
Het risicomodel van 17 genen vertoonde een stabiele prognostische prestatie in meerdere onafhankelijke cohorten. Patiënten met een hoog risico waren verrijkt in pathways zoals “Regulation of actin cytoskeleton” en “Proteoglycans in cancer”, wat wijst op een versterkte remodellering van het cytoskelet en een metastasis-potentieel. Immuunprofilering onthulde hogere proporties M2-macrofagen, opregulatie van genen gerelateerd aan immuuncheckpoints en verhoogde TIDE-scores in de hoogrisicogroep. M2-macrofagen bevorderen immuunevasie, en postoperatieve inflammatoire activatie kan de rekrutering van myeloid-derived suppressor cells (MDSCs) stimuleren35. Opvallend was dat EPHA4 voornamelijk tot expressie kwam in endotheel- en fibroblast-subsets, wat suggereert dat het mogelijk betrokken is bij vasculaire regulatie, stromale remodellering en interacties in de tumormicro-omgeving. EPHA4 is een lid van de Eph-receptor tyrosinekinasefamilie en fungeert als een belangrijke mediator van cel-celcommunicatie via Eph/ephrine-signalering. Activering van EPHA4 kan downstream pathways reguleren die betrokken zijn bij cytoskeletale reorganisatie, celadhesie, migratie en organisatie van de extracellulaire matrix36. In de tumormicro-omgeving is gedereguleerde EPHA4-signalering geïmpliceerd bij het bevorderen van tumorcelinvasie, angiogene responsen, stromale activatie en interacties tussen maligne cellen en omringende stromale componenten37. Deze bevindingen suggereren dat EPHA4 kan bijdragen aan de agressieve biologische kenmerken van hoogrisicopatiënten door vasculaire-stromale communicatie en ecologische remodellering van de tumor te moduleren. Gelijktijdig vertoonden hoogrisicopatiënten hogere mutatiefrequenties in genen zoals MUC16 en CSMD3, die betrokken zijn bij stromale interacties en immuunevasie38,39. Samen genomen lijken hoogrisicopatiënten maligne ecologische kenmerken te vertonen die worden gekenmerkt door gedereguleerde cytoskeletale dynamiek, immunosuppressieve micro-omgevingen en matrixremodellering, wat suggereert dat PARDTGs geassocieerd kunnen zijn met veranderingen in de tumorecologie en ziekteprogressie.
Anesthetica kunnen ook de expressie van meerdere genen herprogrammeren via modulatie van niet-coderende RNA-netwerken, wat de adhesie, migratie, apoptose-resistentie en het behoud van stamcelkenmerken van tumorcellen beïnvloedt en daarmee potentieel het risico op postoperatieve recidieven verandert40,41. In ons miRNA-transcriptiefactor-kernregulerend netwerk werden miR-27a-3p, miR-34a-5p en miR-106b-5p geïdentificeerd als potentiële regulatoire hubs, en uitgebreid bewijs ondersteunt hun betrokkenheid bij de progressie van OV en anesthetica-gerelateerde farmacologische responsen42,43,44. FOXC1 speelt als centrale transcriptiefactor een kritische rol bij het bevorderen van migratie, invasie en EMT-fenotypes bij OV en wordt stroomopwaarts gereguleerd door meerdere niet-coderende RNA's45.
Een pan-cancer analyse werd uitgevoerd om de biologische kenmerken van KRT81 in verschillende maligniteiten verder te onderzoeken, in plaats van om het prognostische model voor eierstokkanker te valideren. In onze analyse was KRT81 significant upgereguleerd in de meeste kankertypen en correleerde het met aneuploïdie, immuuninfiltratie en stromale scores, wat wijst op een betrokkenheid bij de remodellering van de ecologische niche en immuunontwijking. Als lid van de type II keratinefamilie is KRT81 betrokken bij het behoud van de epitheliale cytoskeletale integriteit, cellulaire mechanische stabiliteit en stressadaptatie. Ontregelde KRT81-expressie kan de plasticiteit van tumorcellen beïnvloeden door effecten op de cytoskeletale organisatie, epitheliale differentiatie en interacties tussen tumorcellen en de omringende micro-omgeving. Bovendien is aberrante keratine-remodellering geïmpliceerd in cancerprogressie door modulatie van celproliferatie, migratie, invasie en immuun-stromale communicatie. Eerdere studies rapporteerden dat KRT81 dient als een biomarker voor immuun-subtypering en prognostische stratificatie bij OV46 en bijdraagt aan de vorming van een immunosuppressieve micro-omgeving en het voorspellen van de respons op immunotherapie bij triple-negatieve borstkanker47. Bijgevolg kan KRT81 een cruciaal knooppunt vertegenwoordigen in perioperatieve tumorplasticiteitsnetwerken met mechanische en translationele relevantie.
Collectief biedt deze studie de eerste karakterisering van de expressie-ecologie van PARDTG op ruimtelijk en single-cell-niveau in OV en illustreert hun associaties met immuunmicro-omgevingen, stamceleigenschappen en genomische instabiliteit, wat suggereert dat perioperatieve anesthesiegerelateerde drugtarget-genen mogelijk geassocieerd zijn met tumor-evolutionaire trajecten. Desalniettemin moeten enkele beperkingen worden erkend. Ten eerste was deze studie primair gebaseerd op publiek toegankelijke transcriptomische datasets, en verschillen in monsterbronnen, sequencingplatforms en cohortkenmerken kunnen potentiële batch-effecten introduceren en de robuustheid van de bevindingen beïnvloeden. Ten tweede, hoewel externe cohorten voor validatie zijn gebruikt, is het prognostisch model ontwikkeld op basis van retrospectieve datasets, en potentiële overfitting als gevolg van feature-selectiemethoden kan niet volledig worden uitgesloten. Ten derde, hoewel single-cell- en ruimtelijke transcriptomische analyses inzicht boden in de biologische rollen van PARDTGs, waren deze bevindingen hoofdzakelijk gebaseerd op computationele inferentie en vereisen ze verdere experimentele validatie. Daarnaast omvatten sommige exploratieve analyses, waaronder pan-cancer- en immuuncorrelatie-analyses, meerdere vergelijkingen, en potentiële fout-positieve associaties moeten voorzichtig worden geïnterpreteerd. Ten slotte vormen de beperkte ruimtelijke transcriptomische resolutie en het gebrek aan functionele validatie van de voorspelde regulatoire netwerken aanvullende beperkingen. Toekomstige studies waarin experimentele modellen en klinische monsters worden opgenomen, zijn gerechtvaardigd om de geïdentificeerde mechanismen verder te valideren.
Deze studie heeft aangetoond dat PARDTGs belangrijke transcriptionele ecologische functies uitoefenen bij OV en mogelijk betrokken zijn bij postoperatieve, door de micro-omgeving gedreven invasie en immuunontwijking, wat nieuw moleculair bewijs levert voor perioperatieve precisieanesthesie, risicostratificatie en het voorkomen van recidieven.
Openbaarmakingen
De auteurs verklaren dat zij geen concurrerende belangen hebben
Dankbetuigingen
Wij danken hartelijk de onderzoekers die hun waardevolle datasets hebben gedeeld in de TCGA- en GEO-databases, waaronder TCGA-OV, GSE26193, GSE30161, GSE63885, GSE154600 en GSE211956.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Anti-Cytokeratin 81 antilichaam (konijn polyclonaal) | Proteintech, USA | 11342-1-AP | |
| Anti-GAPDH antilichaam (muis monoklonaal) | Proteintech, USA | 60004-1-Ig | |
| BCA-eiwitassaykit | Thermo Fisher, USA | 23225 | |
| CIBERSORT | Stanford University | https://cibersort.stanford.edu | Immuuninfiltratie | LM22 signaturematrix | Analyse van immuuncelinfiltratie |
| Klinische kenmerken van OV-patiënten | UCSC Xena | http://xena.ucsc.edu/ | Klinische gegevens | 341 patiënten | Klinische correlatieanalyse |
| clusterProfiler-pakket | Bioconductor | https://bioconductor.org/packages/clusterProfiler | Functionele verrijkingsanalyse | Versie 4.8.3 | GO-, KEGG- en GSEA-analyses |
| ggplot2-pakket | CRAN | https://cran.r-project.org/package=ggplot2 | Datavisualisatie | Versie 4.0.2 | Datavisualisatie |
| GSE26193 | GEO-database | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE26193 | Validatiedataset | 107 monsters | Externe validatie |
| GSE30161 | GEO-database | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE30161 | Validatiedataset | 58 monsters | Externe validatie |
| GSE63885 | GEO-database | https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi?acc=GSE63885 | Validatiedataset | 70 monsters | Externe validatie |
| GSVA-pakket | Bioconductor | https://bioconductor.org/packages/GSVA | Gene set verrijkingsanalyse | Versie 2.4.9 | ssGSEA-analyse |
| limma-pakket | Bioconductor | https://bioconductor.org/packages/limma/ | Differentiële expressieanalyse | Versie 3.56.2 | DEG-analyse |
| Informatie over algehele overleving van OV-patiënten | UCSC Xena | http://xena.ucsc.edu/ | Overlevingsgegevens | 353 patiënten | Constructie van prognostisch model |
| PVDF-membraan | Millipore, USA | IPVH00010 | |
| R | R Foundation for Statistical Computing | https://www.r-project.org/ | Bioinformatica-software | Versie 4.3.1 | Statistische analyses |
| RIPA-buffer | Beyotime, China | P0013B | |
| Seurat-pakket | CRAN | https://satijalab.org/seurat/ | Single-cell analyse | Versie 5.4.0 | Single-cell RNA-seq analyse |
| STRING-database | STRING Consortium | https://string-db.org | Eiwitinteractiedatabase | Versie 12.0 | Constructie van PPI-netwerk |
| survival-pakket | CRAN | https://cran.r-project.org/package=survival | Overlevingsanalyse | Versie 3.5.5 | Overlevingsanalyse |
| TCGA TARGET GTEx (Toil) eierstokgenexpressiegegevens | UCSC Xena | http://xena.ucsc.edu/ | Trainingsdataset | 420 TCGA-tumormonsters | Trainingscohort |
| TCGA TARGET GTEx (Toil) data van normaal eierstokweefsel | UCSC Xena | http://xena.ucsc.edu/ | Referentiedataset normaal weefsel | 88 GTEx-normale monsters | Differentiële expressieanalyse |
Referenties
- Caruso G, Weroha SJ, Cliby W. Ovarian cancer: a review. JAMA. 2025;334(14):1278-91.
- Konstantinopoulos PA, Matulonis UA. Clinical and translational advances in ovarian cancer therapy. Nat Cancer. 2023;4(9):1239-57.
- Horowitz M, Neeman E, Sharon E, Ben-Eliyahu S. Exploiting the critical perioperative period to improve long-term cancer outcomes. Nat Rev Clin Oncol. 2015;12(4):213-26.
- Piegeler T, Beck-Schimmer B. Anesthesia and colorectal cancer: the perioperative period as a window of opportunity. Eur J Surg Oncol. 2016;42(9):1286-95.
- Zhang B, et al. Anesthetic propofol inhibits ferroptosis and aggravates distant cancer metastasis via Nrf2 upregulation. Free Radic Biol Med. 2023;195:298-308.
- He GN, et al. Ketamine induces ferroptosis of liver cancer cells by targeting lncRNA PVT1/miR-214-3p/GPX4. Drug Des Devel Ther. 2021;15:3965-78.
- Montégut L, et al. Benzodiazepines compromise the outcome of cancer immunotherapy. Oncoimmunology. 2024;13(1):2413719.
- Wall T, Sherwin A, Ma D, Buggy DJ. Influence of perioperative anaesthetic and analgesic interventions on oncological outcomes: a narrative review. Br J Anaesth. 2019;123(2):135-50.
- Ponferrada A, et al. Anaesthesia and cancer: can anaesthetic drugs modify gene expression? Ecancermedicalscience. 2020;14:1080.
- Piegeler T, et al. Endothelial barrier protection by local anesthetics: ropivacaine and lidocaine block tumor necrosis factor-α-induced endothelial cell Src activation. Anesthesiology. 2014;120(6):1414-28.
- Xu J, et al. Single-cell RNA sequencing reveals the tissue architecture in human high-grade serous ovarian cancer. Clin Cancer Res. 2022;28(16):3590-602.
- Yu D, et al. Development and validation of a breast cancer survival prediction model based on perioperative anesthesia-related drug target genes and analysis of immune microenvironment and drug sensitivity. Comput Biol Chem. 2026;120(Pt 2):108681.
- Wang S, et al. UCSCXenaShiny: an R/CRAN package for interactive analysis of UCSC Xena data. Bioinformatics. 2022;38(2):527-9.
- Gentric G, et al. PML-regulated mitochondrial metabolism enhances chemosensitivity in human ovarian cancers. Cell Metab. 2019;29(1):156-73.e10.
- Ferriss JS, et al. Multi-gene expression predictors of single-drug responses to adjuvant chemotherapy in ovarian carcinoma: predicting platinum resistance. PLoS One. 2012;7(2):e30550.
- Lisowska KM, et al. Gene expression analysis in ovarian cancer: faults and hints from DNA microarray study. Front Oncol. 2014;4:6.
- Liang L, et al. Integration of scRNA-seq and bulk RNA-seq to analyse the heterogeneity of ovarian cancer immune cells and establish a molecular risk model. Front Oncol. 2021;11:711020.
- Denisenko E, et al. Spatial transcriptomics reveals discrete tumour microenvironments and autocrine loops within ovarian cancer subclones. Nat Commun. 2024;15(1):2860.
- Quan W, et al. Single-cell analysis reveals the roles and regulatory mechanisms of type I interferons in Parkinson’s disease. Cell Commun Signal. 2024;22(1):212.
- Hu C, et al. CellMarker 2.0: an updated database of manually curated cell markers in human/mouse and web tools based on scRNA-seq data. Nucleic Acids Res. 2023;51(D1):D870-6.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43(7):e47.
- Yu G, Wang LG, Han Y, He QY. clusterProfiler: an R package for comparing biological themes among gene clusters. OMICS. 2012;16(5):284-7.
- Mayakonda A, et al. Maftools: efficient and comprehensive analysis of somatic variants in cancer. Genome Res. 2018;28(11):1747-56.
- Zu S, et al. Development and validation of a recurrence risk prediction model for elderly schizophrenia patients. BMC Psychiatry. 2025;25(1):73.
- Zhou G, et al. NetworkAnalyst 3.0: a visual analytics platform for comprehensive gene expression profiling and meta-analysis. Nucleic Acids Res. 2019;47(W1):W234-41.
- Liao C, Wang X. TCGAplot: an R package for integrative pan-cancer analysis and visualization of TCGA multi-omics data. BMC Bioinformatics. 2023;24(1):483.
- Swanton C, et al. Embracing cancer complexity: hallmarks of systemic disease. Cell. 2024;187(7):1589-616.
- Vendramin R, Litchfield K, Swanton C. Cancer evolution: Darwin and beyond. EMBO J. 2021;40(18):e108389.
- Demicheli R, et al. The effects of surgery on tumor growth: a century of investigations. Ann Oncol. 2008;19(11):1821-8.
- Marinho V, et al. Genetic influence alters the brain synchronism in perception and timing. J Biomed Sci. 2018;25(1):61.
- Pan X, et al. Hepatocyte CHRNA4 mediates the MASH-promotive effects of immune cell-produced acetylcholine and smoking exposure in mice and humans. Cell Metab. 2023;35(12):2231-49.e7.
- Camp AJ, et al. Loss of Grin2a causes a transient delay in the electrophysiological maturation of hippocampal parvalbumin interneurons. Commun Biol. 2023;6(1):952.
- Sun Y, et al. Identification of potential diagnoses based on immune infiltration and autophagy characteristics in major depressive disorder. Front Genet. 2022;13:702366.
- Lennon FE, Moss J, Singleton PA. The µ-opioid receptor in cancer progression: is there a direct effect? Anesthesiology. 2012;116(4):940-5.
- Mohammadpour H, et al. β2-adrenergic receptor-mediated signaling regulates the immunosuppressive potential of myeloid-derived suppressor cells. J Clin Invest. 2019;129(12):5537-52.
- Bhatia S, et al. Effects of altered ephrin-A5 and EphA4/EphA7 expression on tumor growth in a medulloblastoma mouse model. J Hematol Oncol. 2015;8:105.
- Dong Y, et al. MicroRNA-335 suppresses the proliferation, migration, and invasion of breast cancer cells by targeting EphA4. Mol Cell Biochem. 2018;439(1-2):95-104.
- Li X, Pasche B, Zhang W, Chen K. Association of MUC16 mutation with tumor mutation load and outcomes in patients with gastric cancer. JAMA Oncol. 2018;4(12):1691-8.
- Zhao Y, et al. Patient-derived ovarian cancer organoid carries immune microenvironment and blood vessel keeping high response to cisplatin. MedComm (2020). 2024;5(9):e697.
- Jiang S, et al. Effects of propofol on cancer development and chemotherapy: potential mechanisms. Eur J Pharmacol. 2018;831:46-51.
- Wang ZT, et al. Propofol suppresses proliferation and invasion of pancreatic cancer cells by upregulating microRNA-133a expression. Genet Mol Res. 2015;14(3):7529-37.
- Li E, Han K, Zhou X. MicroRNA-27a-3p downregulation inhibits malignant biological behaviors of ovarian cancer by targeting BTG1. Open Med (Wars). 2019;14:577-85.
- Zhang Y, et al. Sevoflurane inhibits the apoptosis of hypoxia/reoxygenation-induced cardiomyocytes via regulating miR-27a-3p-mediated autophagy. J Pharm Pharmacol. 2021;73(11):1470-9.
- Zhao H, et al. Sevoflurane inhibits migration and invasion of glioma cells via regulating the miR-34a-5p/MMP-2 axis. Life Sci. 2020;256:117897.
- Wu Z, et al. Circ-PTK2 (hsa_circ_0008305) regulates the pathogenic processes of ovarian cancer via the miR-639 and FOXC1 regulatory cascade. Cancer Cell Int. 2021;21(1):277.
- Hu Y, et al. DNA methylation and transcription factor-driven immune subtypes in ovarian cancer. Discov Oncol. 2025;16(1):1646.
- Yan Z, et al. The prognostic marker KRT81 is involved in suppressing CD8+ T cells and predicts immunotherapy response for triple-negative breast cancer. Cancer Biol Ther. 2024;25(1):2355705.