Dit protocol beschrijft in vivo- en in vitro-benaderingen om te onderzoeken hoe N-lactoyl-fenylalanine invloed heeft op diabetische cardiomyopathie, het lipidenmetabolisme in het hart en de cholesterolsynthese, met een focus op de adenosine monofosfaat-geactiveerd proteïnekinase alfa 1/3-hydroxy-3-methylglutaryl-co-enzym A reductase-route.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Onderzoeksartikel
N-Lactoyl-fenylalanine verbetert de hartfunctie in een muismodel van diabetische cardiomyopathie door regulatie van het lipidemetabolisme
In dit artikel
Samenvatting
Samenvatting
Diabetische cardiomyopathie (DCM) is een van de meest ernstige complicaties van diabetes. N-lactoyl-fenylalanine (Lac-Phe), een endogene metaboliet, kan gewichtsverlies bevorderen en de glucosehomeostase verbeteren. Deze studie beoogde het therapeutische effect van Lac-Phe op DCM te onderzoeken en het onderliggende mechanisme verder te exploreren. Type 2 diabetische muizen met DCM werden behandeld met Lac-Phe. Lac-Phe verbeterde de cardiale contractiele functie, verminderde pathologische remodellering en reduceerde de lipideaccumulatie in het hart. In vitro werden de effecten van Lac-Phe onderzocht in H9c2-cellen die waren gestimuleerd met hoge glucoseconcentraties en palmitinezuur. Lac-Phe verminderde de lipideaccumulatie door de cholesterolsynthese in H9c2-cellen te verlagen. Mechanistisch gezien bevorderde Lac-Phe de fosforylering en activering van adenosine monophosphate-activated protein kinase alpha 1 (AMPKα1). Vervolgens fosforyleerde en inhibeerde het geactiveerde AMPKα1 zijn downstream-target, 3-hydroxy-3-methylglutaryl-coenzym A reductase (HMGCR), wat leidde tot een verminderde cholesterolsynthese en uiteindelijk de onbalans in het lipidemetabolisme in H9c2-cellen verbeterde. Deze bevindingen wijzen erop dat Lac-Phe het lipidemetabolisme in H9c2-cellen bij DCM verbetert via de AMPKα1/HMGCR-route, waardoor de cardiale contractiele functie wordt verbeterd en pathologische remodellering wordt verminderd. Lac-Phe kan een potentiële therapeutische benadering vormen voor diabetische cardiomyopathie.
Inleiding
Diabetes is een metabole ziekte die wordt gekenmerkt door aanhoudende hyperglykemie1. In de afgelopen twee decennia is diabetes een van de tien belangrijkste doodsoorzaken wereldwijd geworden, waarbij jaarlijks meer dan zes miljoen mensen sterven aan diabetes en de complicaties daarvan2. Diabetische cardiomyopathie (DCM), een cardiale pathologische aandoening als gevolg van diabetes, is een van de ernstigste complicaties geassocieerd met diabetes3,4. Het fungeert als een onafhankelijke risicofactor voor hartfalen en wordt gekenmerkt door structurele en functionele myocardiale veranderingen5,6, waaronder cardiale fibrose en cardiomyocytenhypertrofie, die uiteindelijk leiden tot zowel diastolische als systolische dysfunctie. Hoewel verschillende conventionele cardiovasculaire therapieën, zoals β-blokkers, angiotensine-converterend enzymremmers en angiotensine II type 1 receptorblokkers, momenteel worden ingezet bij de behandeling van DCM7,8, blijft hun effectiviteit in klinische settings suboptimaal. Aangezien de mechanismen ten grondslag aan DCM nog niet grondig zijn bestudeerd9, is er momenteel geen duidelijke behandelstrategie die specifiek op deze ziekte is gericht10,11. De klinische manifestaties van DCM progresseren van asymptomatische diastolische dysfunctie in het vroege stadium naar systolische dysfunctie en klinisch hartfalen in het late stadium, en zelfs tot de dood12,13. Daarom is er een dringende noodzaak om effectieve behandelopties voor deze aandoening te onderzoeken en te ontwikkelen.
Een verstoord lipidenmetabolisme is een kenmerkend aspect van DCM14. Bij DCM kunnen verhoogde spiegels van vrije vetzuren (FFAs) in het bloed leiden tot een overmatige opname van vetzuren door cardiomyocyten15,16. Het vetzuurmetabolisme in cardiomyocyten is hoofdzakelijk afhankelijk van vetzuuroxidatie. Na verloop van tijd is de vetzuuroxidatie in cardiomyocyten onvoldoende om alle opgenomen vetzuren volledig te metaboliseren, waardoor overtollige vetzuren en hun intermediaire metabolieten zich ophopen in de cardiomyocyten17. Deze overmatige lipidenbelasting induceert lipotoxiciteit, verstoort de energievoorziening van het myocard en bevordert cardiale oxidatieve stress en inflammatoire responsen, wat uiteindelijk ernstige schade aan de cardiomyocyten veroorzaakt18,19. Daarom kan het actief reguleren van het cardiale lipidenmetabolisme een potentieel therapeutisch doel vormen voor DCM20.
N-lactoyl-fenylalanine (Lac-Phe) is een endogene metaboliet waarvan de concentratie snel stijgt na lichaamsbeweging21. Mechanistisch gezien wordt Lac-Phe gesynthetiseerd door het cytosolische enzym carnosine dipeptidase 2 (CNDP2) via de condensatie van lactaat en fenylalanine. Deze biosynthetische route is wijdverspreid in diverse celtypen, waaronder macrofagen, epitheelcellen en mesenchymale stamcellen, die Lac-Phe in de circulatie uitscheiden na fysieke activiteit22. Chronische toediening van Lac-Phe is effectief gebleken in het verminderen van de voedselinname, het verlagen van obesitas en het lichaamsgewicht, en het verbeteren van de glucosehomeostase21. Een recente studie heeft aangetoond dat Lac-Phe het lipidenmetabolisme van microglia/macrofagen kan verbeteren na een dwarslaesie23. Interessant is dat studies aangeven dat zowel acute als chronische toediening van metformine, een eerstelijnsmedicijn voor type 2 diabetes, de Lac-Phe-spiegels kan verhogen en dat Lac-Phe de anti-obesitas effecten van metformine medieert22. Bovendien hebben Sha et al. onlangs aangetoond dat Lac-Phe myocardiale celdood vermindert door mitochondriale dysfunctie te verlichten, waardoor hartfalen geïnduceerd door transverse aortic constriction (TAC) wordt verbeterd24. Langdurige hyperglykemie en obesitas zijn belangrijke factoren die bijdragen aan de ontregeling van het lipidenmetabolisme bij DCM25. Gezamenlijk suggereert dit bewijs dat Lac-Phe een potentieel therapeutisch effect kan hebben op DCM. Tot op heden is de rol van Lac-Phe specifiek bij DCM echter nog niet onderzocht.
In deze studie hebben we vastgesteld dat exogene toediening van Lac-Phe aan muizen met diabetische cardiomyopathie de cardiale contractiele functie effectief verbeterde en de pathologische cardiale remodellering verminderde. We stelden vast dat Lac-Phe de hartfunctie bij muizen met DCM verbeterde via de regulatie van de disbalans in het lipidenmetabolisme. Lac-Phe verminderde de accumulatie van lipidedruppels (LD) in cardiomyocyten van muizen met DCM en verlaagde het cholesterolgehalte in het hart. Mechanistisch gezien bevorderde Lac-Phe de fosforylering en activatie van adenosinemonofosfaat-geactiveerd proteïnekinase alfa 1 (AMPKα1), waardoor de fosforylering van 3-hydroxy-3-methylglutaryl-co-enzym A reductase (HMGCR) werd gestimuleerd. Fosforylering van HMGCR vermindert de activiteit ervan, wat leidt tot een afname van de cholesterolproductie en daarmee de disbalans in het lipidenmetabolisme in cardiomyocyten verbetert. Deze resultaten bieden een theoretische basis voor de potentiële behandeling van DCM met Lac-Phe.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Het protocol voor het dieronderzoek is goedgekeurd door de Institutionele Ethiekcommissie van het Nanjing Drum Tower Hospital (Goedkeuringsnummer: 2025AE1065, 26 september 2025) en is uitgevoerd in overeenstemming met de richtlijnen zoals beschreven in de Guidelines for the Care and Use of Laboratory Animals (8e editie), gepubliceerd door de National Institutes of Health van de Verenigde Staten.
Dieren
In deze studie werden dertig mannelijke C57BL/6J-muizen van 5 weken oud gebruikt. Na 1 week adaptieve voeding werden alle muizen gehuisvest met toegang tot voedsel en water onder een alternerende dag-nachtcyclus van 12 u bij een temperatuur van 22°C ± 2°C en een luchtvochtigheid van 40%–60%. Een HFD gecombineerd met een lage dosis STZ werd gebruikt om het DCM-muismodel te vestigen (Figuur 1A). Vier weken na de start van de voeding met een vetrijk dieet (HFD; 60% vet, 20% eiwit en 20% koolhydraten) werden de muizen 's nachts gevast en vervolgens streptozotocine (STZ; 8 mg/mL opgelost in citraatbuffer, pH 4.5) toegediend via intraperitoneale injectie met een dosering van 35 mg/kg/dag gedurende drie opeenvolgende dagen. Muizen in de controlegroep kregen een controledieet (10% vet, 20% eiwit en 70% koolhydraten) en ontvingen gelijke volumes citraatbuffer. Na nog eens 15 weken onderhoud met het vetrijke dieet werden muizen die aan beide criteria voldeden, een willekeurige bloedglucosewaarde van ≥13,3 mmol/L en een linkerventrikelejectiefractie (LVEF) van <55%, gedefinieerd als succesvol gevestigde DCM-modellen. Deze gevalideerde DCM-muizen werden genummerd en met behulp van een willekeurige getallentabel random toegewezen aan de DCM- en DCM + Lac-Phe-groepen. Ongeveer de helft van de muizen ontwikkelde het model niet; deze dieren werden geëuthanaseerd in overeenstemming met de vereisten voor dierethiek. Kort samengevat werden de muizen verdeeld in drie groepen: Controle, DCM en DCM + Lac-Phe (n = 10 per groep). Alle 10 muizen per groep ondergingen echocardiografie, meting van het lichaamsgewicht en een OGTT. Na de behandelingsperiode van 28 dagen werden de harten verzameld voor verdere analyses. Er waren 10 muizen in elke groep. Hiervan werden drie muizen per groep gebruikt voor transcriptoomsequencing, drie voor transmissie-elektronenmicroscopie en histologische kleuring, en drie voor eiwitexpressieanalyse. De resterende muis in elke groep werd bewaard als reserve. Na de succesvolle vestiging van het DCM-model werd Lac-Phe opgelost in normale zoutoplossing tot een uiteindelijke concentratie van 10 mg/mL. Muizen in de DCM + Lac-Phe-groep ontvingen intraperitoneel Lac-Phe in een dosis van 50 mg/kg/dag met een injectievolume van 5 mL/kg, eenmaal daags gedurende 28 opeenvolgende dagen. Muizen in de Controle- en DCM-groepen kregen een gelijk volume normale zoutoplossing toegediend als voertuigcontrole.
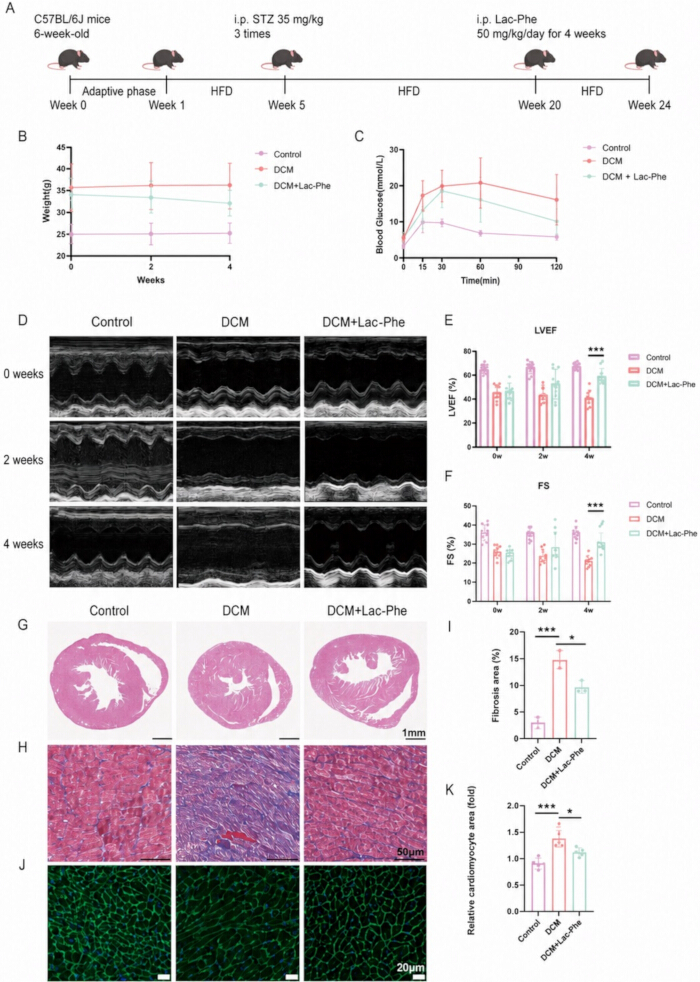
Figuur 1Lac-Phe verbetert de hartfunctie en pathologische remodeling bij muizen met diabetische cardiomyopathie. (A) Schema van het HFD/STZ-geïnduceerde DCM-muismodel en het Lac-Phe-behandelingsprotocol. (B) Lichaamsgewichten van muizen in de groepen Controle, DCM en DCM + Lac-Phe tijdens de behandelingsperiode van 4 weken; n = 10 per groep. (C) Orale glucosetolerantietest (OGTT) in de aangegeven groepen; n = 10 per groep. (D) Representatieve echocardiografische beelden na 0, 2 en 4 weken behandeling. (E,F) Kwantificering van de ejectiefractie van de linkerventrikel (LVEF) (E) en de fractionele verkorting (FS) (F); n = 10 per groep. (G) Representatieve hematoxyline- en eosine- (H&(E)-gekleurde hartcoupes. Schaalbalk = 1 mm. (H,I) Representatieve Masson-trichroomkleuring van hartcoupes (H) en kwantificatie van het fibrotische areaal (I); n = 3 per groep. Schaalbalk = 50 μm(J,K) Representatieve wheat germ agglutinine (WGA)-kleuring van hartsecties (J) en kwantificering van het relatieve cardiomyocytenoppervlak (K); n = 3 per groep. Schaalbalk = 20 μmGegevens worden weergegeven als het gemiddelde ± standaarddeviatie P < 0.05, **P < 0.001. Klik hier om een grotere versie van deze figuur te bekijken.
Hartfunctie
Na anesthesie met isofluraan-inhalatie werden de muizen in rugligging gefixeerd op een temperatuurgecontroleerd platform (37°C). De afmetingen van de linker ventrikel en de bloedstroomsnelheid door de mitralisklep tijdens de diastole en systole werden gemeten met een echocardiografieapparaat uitgerust met een 40 MHz transducer, waarmee de LVEF en de verkortingsfractie (FS) werden berekend. Van elke muis werden drie opeenvolgende hartcycli geregistreerd.
Celbehandeling
H9c2-cellen werden gekweekt in Dulbecco’s modified Eagle’s medium aangevuld met 10% foetaal runderserum en 1% penicilline-streptomycine bij 37°C in een bevochtigde atmosfeer met 5% CO₂. De cellen werden elke 2–3 dagen gesubcultured zodra ze een confluentie van 70%–80% hadden bereikt. Voor de experimenten werden de cellen uitgeplaat in 10 cm schalen en vervolgens verdeeld over drie groepen: Controle, hoge glucose/palmitinezuur (HG/PA) en HG/PA + Lac-Phe. Cellen in de HG/PA- en HG/PA + Lac-Phe-groepen werden eerst gedurende 24 u blootgesteld aan 0,25 mM palmitinezuur en 50 mM glucose. Daarna werden de cellen in de HG/PA + Lac-Phe-groep gedurende nog eens 24 u behandeld met 10 μg/mL Lac-Phe, terwijl de blootstelling aan HG/PA werd gehandhaafd; cellen in de HG/PA-groep ontvingen een equivalent volume PBS onder dezelfde HG/PA-condities. In de p-AMPK-inhibitie-experimenten werd 10 μM AMPK-IN-3 (opgelost in DMSO) gelijktijdig met Lac-Phe gedurende 24 u toegevoegd, en de overeenkomstige controlegroepen ontvingen een gelijk volume DMSO. Voor de atorvastatine-experimenten werden H9c2-cellen onder HG/PA-condities gedurende 24 u behandeld met 10 μM atorvastatine, ofwel alleen, ofwel in combinatie met 10 μg/mL Lac-Phe.
Histologische kleuring
Na 28 dagen toediening van Lac-Phe werden de harten van de muizen geoogst en gedurende 24 u gefixeerd door immersie in 4% paraformaldehyde (pH 7.4). Het gefixeerde hartweefsel werd ingebed in paraffine en gesneden in plakjes van 6-μm dik. De weefselcoupes werden gekleurd met hematoxyline en eosine, tarwekiemagglutinine en Massons trichroom. Alle kleuringsprocedures werden strikt uitgevoerd volgens de protocollen van de fabrikant. Whole-slide imaging werd uitgevoerd bij een 20× vergroting met behulp van een hoge-resolutie veldmicroscoop uitgerust met een digitaal camerasysteem.
Western blot-analyse
De proteïneconcentratie werd bepaald met behulp van de Bradford-assay. Weefsellysaten werden gescheiden via SDS-PAGE op 10% (w/v) acrylamidegels en elektroforetisch overgebracht op polyvinylideenfluoride-membranen. Aspecifieke bindingsplaatsen werden geblokkeerd met 5% runderseerumeiwit gedurende 2 u bij kamertemperatuur. De membranen werden vervolgens overnacht bij 4°C geïncubeerd met primaire antilichamen (verdund 1:1.000), gevolgd door zes wasstappen met TBST (elk 5 min) op een shaker. De membranen werden daarna gedurende 2 u bij kamertemperatuur geïncubeerd met mierikswortelperoxidase-geconjugeerde secundaire antilichamen (verdund 1:5.000), gevolgd door nogmaals zes wasstappen met TBST (elk 5 min). Proteïnebanden werden gevisualiseerd met behulp van een enhanced chemiluminescence-reagenskit. Kwantificering van de western blot-resultaten werd uitgevoerd via densitometrische analyse met ImageJ-software. Alle in deze studie gebruikte antilichamen staan vermeld in de Tabel met Materialen.
Transcriptomica
Totaal RNA werd geïsoleerd uit hartweefsel van C57BL/6J-muizen met behulp van TRIzol Reagent en RNeasy mini-kits. De RNA-kwaliteit werd geëvalueerd met een 2100 bioanalyzer, wat een hoge RNA-zuiverheid en integriteit aantoonde. RNA-seq-bibliotheken werden klaargemaakt volgens de VAHTS Universal V10 RNA-seq Library Prep Kit en gesequenced met een Illumina NovaSeq 6000 System (single-read, 150 bp). Differentieel tot expressie gebrachte genen werden geïdentificeerd met DESeq2, waarbij een aangepaste P-waarde < 0,05 en een absolute log₂ fold change > 1 als statistisch significant werden beschouwd. Gene Ontology (GO) verrijkingsanalyse werd uitgevoerd op de differentieel tot expressie gebrachte genen, en de significantie van de verrijking van deze genen in GO-termen werd berekend met het hypergeometrische distributie-algoritme.
Oil Red O-kleuring en LD540-lipidenkleuring
Hartweefsel werd ingebed in OCT-compound en vervolgens gesneden in coupes van 10 μm dik. De frozen sections werden gedurende 30 min geëquilibreerd bij kamertemperatuur en gefixeerd met 4% paraformaldehyde gedurende 10 min. Na het wassen met PBS werden de coupes 15 s in 60% isopropylalcohol geplaatst en 30 min bedekt met Oil Red O-werkoplossing. De coupes werden vervolgens 15 s behandeld met 60% isopropylalcohol en drie keer gewassen met PBS. Voor LD540-lipidkleuring werden H9c2-cellen gewassen met PBS en gedurende 10 min gefixeerd met 4% paraformaldehyde bij kamertemperatuur. De cellen werden daarna 30 min geïncubeerd met 10 μM LD540 bij kamertemperatuur.
Transmissie-elektronenmicroscopie (TEM)
Verse muizenhartweefsels werden gesneden in stukjes van 1–2 mm3, gefixeerd in elektronenmicroscoop-fixatief bij 4°C gedurende 4 u, vervolgens gewassen met dubbel gedestilleerd water en ondergedompeld in ethanoloplossingen met progressief toenemende concentraties. De monsters werden ingebed, gesneden en vervolgens waargenomen onder een transmissie-elektronenmicroscoop.
Totaal cholesterolgehalte (TC)
De totale cholesterolspiegels (TC) in serum- en H9c2-celmonsters werden gemeten met de Amplex Red Cholesterol and Cholesteryl Ester Assay Kit volgens de instructies van de fabrikant.
Orale glucosetolerantietest (OGTT)
Muizen werden 14 u vastgehouden (van 19:00 tot 9:00) en kregen glucose via een sonde (20% voorraad, 2 g/kg). De bloedglucosewaarden werden bepaald met bloed dat werd afgenomen uit de staartvene op 0, 15, 30, 60 en 120 min na de sondevoeding.
Meting met Cell Counting Kit-8 (CCK-8)
CCK-8 werd gebruikt om de celviabiliteit te meten. H9c2-cellen werden gezaaid in 96-wells platen met een initiële dichtheid van 3 × 10⁴ cellen/well. Na behandeling met verschillende concentraties Lac-Phe onder HG/PA-condities gedurende 24 u, werd 10 μL van het kit-reagens toegevoegd aan 100 μL cultuurmedium per well, gevolgd door incubatie bij 37°C gedurende 4 u. De absorbentie werd gemeten bij 450 nm met een multimode microplate reader om de optische dichtheid (OD)-waarde te bepalen.
Moleculaire docking
De kristalstructuren van Lac-Phe en AMPKα1 werden gedownload van PubChem26. Het moleculaire docking-proces werd uitgevoerd met behulp van CB-DOCK227.
Statistische analyse
Alle echocardiografische metingen, histologische kleuringen en beeldkwantificaties werden uitgevoerd door onderzoekers die blind waren voor de groepsindeling. Alle data-analyses werden uitgevoerd met Prism en SPSS 20.0. Elk experiment werd minstens drie keer herhaald en de gegevens werden gepresenteerd als het gemiddelde ± standaarddeviatie. Homogeniteit van de variantie werd beoordeeld met de toets van Levene. Normaliteit werd bevestigd door grafische inspectie van de residuen. Vergelijkingen tussen meerdere groepen werden uitgevoerd met een eenweg-variantieanalyse, gevolgd door de post-hoc toets van Tukey voor paarsgewijze vergelijkingen. Voor OGTT-gegevens werd een tweeweg-ANOVA voor herhaalde metingen gebruikt, met de groep als factor tussen de proefpersonen en de tijd als factor binnen de proefpersonen, gevolgd door de post-hoc toets van Bonferroni. P < 0,05 werd beschouwd als statistisch significant.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Lac-Phe improves cardiac function in diabetic cardiomyopathy mice
We induced DCM in C57BL/6J mice using an HFD combined with STZ injections (Figure 1A) and randomly assigned the successfully established DCM mice to an untreated group (DCM group) and a Lac-Phe treatment group, with control C57BL/6J mice serving as the negative control. According to the study by Li et al.21, we selected 50 mg/kg as the therapeutic dose of Lac...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
In deze studie leveren we bewijs dat Lac-Phe een therapeutisch effect heeft op DCM. Lac-Phe verbeterde de cardiale remodellering en de cardiale dysfunctie bij DCM, terwijl de cholesterolproductie in cardiomyocyten werd verminderd en de verstoring van het lipidenmetabolisme werd verlicht. Mechanistisch gezien verhoogde Lac-Phe de fosforylering van AMPKα1. Vervolgens werd de toegenomen fosforylering van AMPKα1 geassocieerd met een verhoogde fosforylering en inhibitie van het downstream-doelwit HMGCR, wat leidde tot een ver...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
Belangenverstrengeling:
De auteurs hebben niets te melden.
Dankbetuigingen
Wij willen onze oprechte dank uitspreken aan de onderzoekers en het personeel van het Nanjing Drum Tower Hospital Clinical College en het Affiliated Hospital of Medical School van de Nanjing University voor hun technische ondersteuning. Dit onderzoek werd gefinancierd door beurzen van de National Natural Science Foundation of China (beursnummers 81870291 en 82300384), de China Postdoctoral Science Foundation (beursnummer 2023M731625) en de Natural Science Foundation of Jiangsu Province (beursnummer BK20220175). Tevens waarderen wij de middelen en de collaboratieve ondersteuning die zijn geboden door het Institute of Advanced Synthesis aan de Nanjing Tech University.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| AMPK-IN-3 (p-AMPK-remmer) | MedChemExpress (MCE) | HY-132921 | Gebruikt in een concentratie van 10 μM tijdens AMPK-remmingsexperimenten om de AMPK-signalering in Lac-Phe-behandelde cellen te remmen. |
| Amplex Red Cholesterol and Cholesteryl Ester Assay Kit | Beyotime | S0211S | Gebruikt om de totale cholesterolspiegels in serum en H9c2-celmonsters te bepalen. |
| Anti-AMPKα1 | Cell Signaling Technology | 2532; RRID: AB_330331 | Primair antilichaam gebruikt voor western blot-analyse van AMPKα1. |
| Anti-GAPDH | Cell Signaling Technology | 5174; RRID: AB_10622025 | Primair antilichaam gebruikt voor western blot-analyse van GAPDH. |
| Anti-HMGCR | Abcam | ab174830; RRID: AB_2749818 | Primair antilichaam gebruikt voor western blot-analyse van HMGCR. |
| Anti-p-AMPKα1 (Thr172) | Cell Signaling Technology | 2535; RRID: AB_331250 | Primair antilichaam gebruikt voor western blot-analyse van gefosforyleerd AMPKα1. |
| Anti-p-HMGCR (Ser872) | Abcam | ab124350 | Primair antilichaam gebruikt voor western blot-analyse van gefosforyleerd HMGCR. |
| Anti-rabbit IgG, HRP-gekoppeld antilichaam | Cell Signaling Technology | 7074; RRID: AB_2099233 | Gebruikt in een verdunning van 1:5.000 voor western blot-detectie. |
| Anti-β-tubuline | Cell Signaling Technology | 2128; RRID: AB_823664 | Primair antilichaam gebruikt voor western blot-analyse van β-tubuline. |
| Atorvastatine | MedChemExpress (MCE) | HY-17379 | Alleen of in combinatie met Lac-Phe gebruikt om de effecten op lipide-accumulatie, totale cholesterolspiegels en HMGCR-fosforylering in HG/PA-behandelde H9c2-cellen te beoordelen. |
| Bovien serumalbumine | Sigma-Aldrich | A7906 | Gebruikt in een concentratie van 5% om aspecifieke binding tijdens western blot-analyse te blokkeren. |
| Bradford-assay reagens/kit | Thermo Fisher Scientific | 23200 | Gebruikt om de eiwitconcentratie te bepalen voorafgaand aan de western blot-analyse. |
| C57BL/6J-muizen (5 weken oud, mannelijk) | Model Animal Research Center of Nanjing University | N/A | Gebruikt voor het tot stand brengen van het HFD/STZ-geïnduceerde muismodel voor diabetische cardiomyopathie. |
| Cell Counting Kit-8 (CCK-8) | Sharebio | SB-CCK8S | Gebruikt om de levensvatbaarheid van H9c2-cellen na behandeling te meten. |
| Citraatbuffer | In-house bereid | N/A | Bereid bij pH 4,5 en gebruikt om STZ op te lossen en als bijbehorende vehikelcontrole. |
| Controledieet (10% vet, 20% eiwit, 70% koolhydraten) | Research Diets, Inc. | D12450J | Gebruikt als dieet voor de muizen in de controlegroep. |
| D-(+)-Glucose | Sigma-Aldrich | N/A | Gebruikt voor HG/PA-celbehandeling en voor de orale glucosetolerantietest. |
| Dimethylsulfoxide (DMSO) | Sigma-Aldrich | D2650 | Gebruikt als oplosmiddel voor AMPK-IN-3 en als bijbehorende vehikelcontrole. |
| Dulbecco’s modified Eagle’s medium | Gibco, Thermo Fisher Scientific | 11965092 | Gebruikt als basaal kweekmedium voor H9c2-cellen. |
| Echocardiografieapparaat met 40 MHz transducer | FUJIFILM VisualSonics | Vevo 3100 LT; 40 MHz transducer | Gebruikt om de linker ventrikelafmetingen en de bloedstroomsnelheid van de mitralisklep te meten en om LVEF en FS af te leiden. |
| Fixeerder voor elektronenmicroscopie | ServiceBio | G1102 | Gebruikt om vers hartweefsel van muizen te fixeren voor transmissie-elektronenmicroscopie. |
| Ethanol | Sigma-Aldrich | E7023 | Gebruikt in progressief toenemende concentraties voor dehydratie tijdens de monsterpreparatie voor transmissie-elektronenmicroscopie. |
| Foetaal bovien serum | Gibco, Thermo Fisher Scientific | 10099141 | Gebruikt in een concentratie van 10% als supplement voor het H9c2-celkweekmedium. |
| H9c2-cellijn | Sunncell | RRID: CVCL_0286 | Gebruikt als in vitro cardiaal celmodel voor HG/PA- en Lac-Phe-behandelingsexperimenten. |
| Hematoxyline- en eosinekleuring | ServiceBio | G1005-1/2 | Gebruikt voor histologische beoordeling van hartweefsel. |
| Hogevetdieet (60 kcal% vet) | Research Diets, Inc. | D12492 | Gebruikt samen met een lage dosis STZ om het muismodel voor diabetische cardiomyopathie tot stand te brengen. |
| Hoge-resolutie brightfield-microscoop | Leica | DM2500 | Gebruikt voor whole-slide imaging van gekleurd hartweefsel bij een vergroting van 20×. |
| ImageJ | National Institutes of Health | N/A | Gebruikt voor densitometrische kwantificering van western blot-resultaten. |
| Isofluraan | Sigma-Aldrich | 792632 | Gebruikt voor anesthesie tijdens echocardiografie bij muizen. |
| Isopropylalcohol | Sigma-Aldrich | I9516 | Gebruikt in een concentratie van 60% tijdens Oil Red O-kleuring van bevroren hartcoupes. |
| LD540 lipidekleuring | Beyotime | C2050S-1 | Gebruikt in een concentratie van 10 μM om intracellulaire lipiden te kleuren. |
| Masson’s trichroomkleuring | ServiceBio | G1006 | Gebruikt voor histologische kleuring van hartweefsel. |
| N-lactoyl-fenylalanine (Lac-Phe) | MedChemExpress (MCE) | HY-146098 | Toegediend aan DCM-muizen en gebruikt voor de behandeling van HG/PA-blootgestelde H9c2-cellen. |
| Oil Red O-werkoplossing | ServiceBio | G1015-100ML | Gebruikt om lipiden in bevroren hartweefselcoupes te kleuren. |
| Omni-ECL Efficient Light Chemiluminescence Kit | EpiZyme | SQ203L | Gebruikt voor chemiluminescente visualisatie van eiwitbanden na western blotting. |
| Palmitinezuur | Sigma-Aldrich | P0500 | Gebruikt in een concentratie van 0,25 mM samen met hoge glucose om het HG/PA-behandelde H9c2-celmodel tot stand te brengen. |
| Paraformaldehyde | Sigma-Aldrich | P6148 | Bereid als een 4% oplossing en gebruikt om hartweefsel en cellen te fixeren vóór histologische of lipidekleuring. |
| Penicilline-streptomycine | Gibco, Thermo Fisher Scientific | 15140122 | Gebruikt in een concentratie van 1% in het H9c2-celkweekmedium. |
| Fosfaatgebufferde zoutoplossing (PBS) | Gibco, Thermo Fisher Scientific | 10010023 | Gebruikt voor het wassen tijdens kleuringsprocedures en als bijbehorende vehikel in celbehandelingsexperimenten. |
| Prism | GraphPad Software | Version 8.0 | Gebruikt voor statistische analyse van experimentele gegevens. |
| PVDF-transfermembraan, 0,45 μm | Thermo Fisher Scientific | 88518 | Gebruikt voor elektroforetische overdracht van eiwitten tijdens western blot-analyse. |
| RNeasy Mini Kit | QIAGEN | 74104 | Gebruikt voor isolatie/zuivering van totaal RNA uit hartweefsel van muizen. |
| Natriumchloride-oplossing, 0,9% (normaal zout) | Sigma-Aldrich | S8776 | Gebruikt om Lac-Phe op te lossen en als vehikelcontrole voor Controle- en DCM-muizen. |
| SPSS | IBM | Version 20.0 | Gebruikt voor statistische analyse van experimentele gegevens. |
| Streptozotocine (STZ) | Sigma-Aldrich | S0130 | Toegediend in combinatie met HFD-voeding om het muismodel voor diabetische cardiomyopathie tot stand te brengen. |
| TBS Tween-20 Buffer (20×) | Thermo Fisher Scientific | 28360 | Gebruikt om membranen te wassen na incubatie met primaire en secundaire antilichamen tijdens western blot-analyse. |
| Tissue-Tek O.C.T. Compound | Sakura Finetek | 4583 | Gebruikt om hartweefsel in te bedden vóór de preparatie van bevroren coupes voor Oil Red O-kleuring. |
| Transmissie-elektronenmicroscoop | HITACHI | HT7800 | Gebruikt om ultrastructurele veranderingen in hartweefsel van muizen te onderzoeken. |
| TRIzol-reagens | Invitrogen | 15596026 | Gebruikt voor de isolatie van totaal RNA uit hartweefsel van muizen. |
| VAHTS Universal V10 RNA-seq Library Prep Kit | Vazyme | NR616-01 | Gebruikt om RNA-seq-libraries voor transcriptomische analyse voor te bereiden. |
| Tarwekiemagglutinine (WGA) | ServiceBio | W7024 | Gebruikt voor histologische beoordeling van hartweefsel. |
Referenties
- Pan KL, Hsu YC, Chang ST, Chung CM, Lin CL. The role of cardiac fibrosis in diabetic cardiomyopathy: from pathophysiology to clinical diagnostic tools. Int J Mol Sci. 2023;24(10):8604.
- Saeedi P, et al. Global and regional diabetes prevalence estimates for 2019 and projections for 2030 and 2045: results from the International Diabetes Federation Diabetes Atlas, 9th edition. Diabetes Res Clin Pract. 2019;157:107843.
- Zou R, et al. PGAM5-mediated PHB2 dephosphorylation contributes to diabetic cardiomyopathy by disrupting mitochondrial quality surveillance. Research. 2022;2022:0001.
- Jia G, DeMarco VG, Sowers JR. Insulin resistance and hyperinsulinaemia in diabetic cardiomyopathy. Nat Rev Endocrinol. 2016;12(3):144–53.
- Low Wang CC, Hess CN, Hiatt WR, Goldfine AB. Clinical update: cardiovascular disease in diabetes mellitus: atherosclerotic cardiovascular disease and heart failure in type 2 diabetes mellitus—mechanisms, management, and clinical considerations. Circulation. 2016;133(24):2459–502.
- Liu P, Zhang Z, Chen H, Chen Q. Pyroptosis: mechanisms and links with diabetic cardiomyopathy. Ageing Res Rev. 2024;94:102182.
- Park JJ. Epidemiology, pathophysiology, diagnosis and treatment of heart failure in diabetes. Diabetes Metab J. 2021;45(2):146–57.
- Gilca GE, et al. Diabetic cardiomyopathy: current approach and potential diagnostic and therapeutic targets. J Diabetes Res. 2017;2017:1310265.
- Nakamura K, et al. Pathophysiology and treatment of diabetic cardiomyopathy and heart failure in patients with diabetes mellitus. Int J Mol Sci. 2022;23(7):3587.
- Han X, et al. Cardiomyocyte OTUD1 drives diabetic cardiomyopathy via directly deubiquitinating AMPKα2 and inducing mitochondrial dysfunction. Nat Commun. 2025;16(1):666.
- Jia G, Hill MA, Sowers JR. Diabetic cardiomyopathy: an update of mechanisms contributing to this clinical entity. Circ Res. 2018;122(4):624–38.
- Yao Y, Yang B, Shi J. TiO(x)(OH)(4-2x) nanosheets with catalytic antioxidative activity alleviate oxidative injury in diabetic cardiomyopathy. J Am Chem Soc. 2025;147(4):3885–95.
- Seferovic PM, et al. Diabetic myocardial disorder: a clinical consensus statement of the Heart Failure Association of the ESC and the ESC Working Group on Myocardial & Pericardial Diseases. Eur J Heart Fail. 2024;26(9):1893–903.
- Wang H, et al. Inhibition of fatty acid uptake by TGR5 prevents diabetic cardiomyopathy. Nat Metab. 2024;6(6):1161–77.
- Zhao Y, et al. Ferroptosis: roles and molecular mechanisms in diabetic cardiomyopathy. Front Endocrinol. 2023;14:1140644.
- Nakamura M. Lipotoxicity as a therapeutic target in obesity and diabetic cardiomyopathy. J Pharm Pharm Sci. 2024;27:12568.
- Nakamura M, et al. Glycogen synthase kinase-3α promotes fatty acid uptake and lipotoxic cardiomyopathy. Cell Metab. 2019;29(5):1119–34.e12.
- Ritchie RH, Abel ED. Basic mechanisms of diabetic heart disease. Circ Res. 2020;126(11):1501–25.
- Thakur M, Tupe RS. Lipoxin and glycation in SREBP signaling: insight into diabetic cardiomyopathy and associated lipotoxicity. Prostaglandins Other Lipid Mediat. 2023;164:106698.
- Dhar A, et al. A comprehensive review of the novel therapeutic targets for the treatment of diabetic cardiomyopathy. Ther Adv Cardiovasc Dis. 2023;17:17539447231210170.
- Li VL, et al. An exercise-inducible metabolite that suppresses feeding and obesity. Nature. 2022;606(7915):785–90.
- Xiao S, et al. Lac-Phe mediates the effects of metformin on food intake and body weight. Nat Metab. 2024;6(4):659–69.
- Ying W, et al. N-lactoyl-phenylalanine modulates lipid metabolism in microglia/macrophage via the AMPK-PGC1α-PPARγ pathway to promote recovery in mice with spinal cord injury. J Neuroinflammation. 2025;22(1):167.
- Sha L, et al. N-Lac-Phe ameliorates myocardial cell death by improving mitochondrial dysfunction, ultimately improving TAC-induced heart failure. Cardiovasc Drugs Ther. 2026;40:1391–401.
- Ke J, Pan J, Lin H, Gu J. Diabetic cardiomyopathy: a brief summary on lipid toxicity. ESC Heart Fail. 2023;10(2):776–90.
- PubChem. PubChem. Available from: https://pubchem.ncbi.nlm.nih.gov/. Accessed August 15, 2026.
- Liu Y, Yang X, Gan J, et al. CB-Dock2: improved protein-ligand blind docking by integrating cavity detection, docking and homologous template fitting. Nucleic Acids Res. 2022;50(W1):W159–W164.
- GeneCards. GeneCards: the Human Gene Database. Version 6.1, June 17, 2026.
- Daina A, Michielin O, Zoete V. SwissTargetPrediction: updated data and new features for efficient prediction of protein targets of small molecules. Nucleic Acids Res. 2019;47(W1):W357–W364.
- Jo Y, DeBose-Boyd RA. Post-translational regulation of HMG CoA reductase. Cold Spring Harb Perspect Biol. 2022;14(12):a041253.
- Steinberg GR, Hardie DG. New insights into activation and function of the AMPK. Nat Rev Mol Cell Biol. 2023;24(4):255–72.
- Istvan ES, Deisenhofer J. Structural mechanism for statin inhibition of HMG-CoA reductase. Science. 2001;292(5519):1160–4.
- Beaudry D, et al. Statin therapy in cardiovascular diseases other than atherosclerosis. Curr Atheroscler Rep. 2007;9(1):25–32.
- Koch CG. Statin therapy. Curr Pharm Des. 2012;18(38):6284–90.
- Dewanjee S, et al. Autophagy in the diabetic heart: a potential pharmacotherapeutic target in diabetic cardiomyopathy. Ageing Res Rev. 2021;68:101338.
- Madonna R, et al. Empagliflozin inhibits excessive autophagy through the AMPK/GSK3β signalling pathway in diabetic cardiomyopathy. Cardiovasc Res. 2023;119(5):1175–89.
- Madhavi YV, et al. Targeting AMPK in diabetes and diabetic complications: energy homeostasis, autophagy and mitochondrial health. Curr Med Chem. 2019;26(27):5207–29.
- Fang C, et al. The AMPK pathway in fatty liver disease. Front Physiol. 2022;13:970292.
- Liu S, et al. AICAR-induced activation of AMPK inhibits TSH/SREBP-2/HMGCR pathway in liver. PLoS One. 2015;10(5):e0124951.
- Zhou H, et al. Empagliflozin rescues diabetic myocardial microvascular injury via AMPK-mediated inhibition of mitochondrial fission. Redox Biol. 2018;15:335–46.
- Lu QB, et al. METRNL ameliorates diabetic cardiomyopathy via inactivation of cGAS/STING signaling dependent on LKB1/AMPK/ULK1-mediated autophagy. J Adv Res. 2023;51:161–79.
- Wang D, et al. FGF1(ΔHBS) prevents diabetic cardiomyopathy by maintaining mitochondrial homeostasis and reducing oxidative stress via AMPK/Nur77 suppression. Signal Transduct Target Ther. 2021;6(1):133.
- He L. Metformin and systemic metabolism. Trends Pharmacol Sci. 2020;41(11):868–81.
- Yang F, et al. Metformin inhibits the NLRP3 inflammasome via AMPK/mTOR-dependent effects in diabetic cardiomyopathy. Int J Biol Sci. 2019;15(5):1010–9.
- Regitz-Zagrosek V, Gebhard C. Gender medicine: effects of sex and gender on cardiovascular disease manifestation and outcomes. Nat Rev Cardiol. 2023;20(4):236–47.
- Evrony GD, Hinch AG, Luo C. Applications of single-cell DNA sequencing. Annu Rev Genomics Hum Genet. 2021;22:171–97.
- Verboom K, et al. Smarter single cell total RNA sequencing. Nucleic Acids Res. 2019;47(16):e93.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
Meer artikelen verkennen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar