Dit protocol beschrijft methoden voor het evalueren van de effecten van paeoniflorine op door geoxideerd low-density lipoproteïne geïnduceerde dysfunctie in RAW264.7-macrofagen door het beoordelen van het lipidenmetabolisme, inflammatoire reacties, oxidatieve stress, apoptose en AMP-geactiveerd proteïnekinase-gerelateerde signalering om mechanistische studies naar macrofaagdysfunctie te ondersteunen.
Onderzoeksartikel
Paeoniflorine vermindert door geoxideerd low-density lipoproteïne geïnduceerde dysfunctie in RAW264.7-cellen met betrokkenheid van AMP-geactiveerd proteïnekinase
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Deze studie beschrijft een protocol waarin netwerkfarmacologie en in vitro-experimenten worden geïntegreerd om de beschermende effecten van Huangqin Tang (HQT) en een van de bioactieve bestanddelen ervan, paeoniflorine (PF), te evalueren tegen macrophage-dysfunctie geïnduceerd door geoxideerd low-density lipoproteïne (ox-LDL) en om AMPK-activated protein kinase (AMPK)-gerelateerde signalering te onderzoeken. Netwerkfarmacologie identificeerde HQT-doelen en pathways geassocieerd met atherosclerose (AS). Een ox-LDL-geïnduceerd RAW264.7 macrophage-model werd gebruikt om lipide-accumulatie, cholesterolefflux, adenosine trifosfaat (ATP)-niveaus, inflammatoire responsen, mitochondriële functie, oxidatieve stress, apoptose en fenotypische markers van macrofagen te beoordelen. HQT en PF werden vergeleken bij niet-cytotoxische concentraties. De betrokkenheid van AMPK werd geëvalueerd met behulp van een cell thermal shift assay (CETSA), farmacologische inhibitie en small interfering RNA (siRNA)-gemedieerde knockdown. ATP-binding cassette transporter A1 (ABCA1), liver X receptor alpha (LXRα), nuclear factor kappa B (NF-κB)-gerelateerde eiwitten en apoptose-geassocieerde eiwitten werden onderzocht via western blotting. Netwerkfarmacologie identificeerde 12 overlappende doelen, waaronder TNF, PPARG en NOS3, verrijkt in pathways gerelateerd aan lipidemetabolisme, inflammatie, AS en AMPK-signalering. Zowel PF als HQT verhoogden de AMPK-fosforylering, verminderden de ox-LDL-geïnduceerde lipide-accumulatie en secretie van inflammatoire cytokinen, en verbeterden de cholesterolefflux. PF herstelde de ATP-niveaus en het mitochondriële membraanpotentieel, verminderde de productie van reactieve zuurstofspecies en apoptose, en verhoogde de ABCA1-expressie. CETSA demonstreerde een verhoogde thermische stabiliteit van AMPK na behandeling met PF. Farmacologische inhibitie of siRNA-gemedieerde knockdown van AMPK verzwakte de PF-geassocieerde veranderingen in ABCA1-expressie, cholesterolefflux, lipide-accumulatie, LXRα-activatie en NF-κB-inhibitie. PF verminderde het aantal CD86⁺ macrofagen en verhoogde het aantal CD206⁺ macrofagen, terwijl AMPK-silencing deze veranderingen gedeeltelijk terugdraaide. NF-κB-inhibitie produceerde vergelijkbare effecten op de cholesteroholmostase en fenotypische markers van macrofagen. Dit protocol maakt de evaluatie mogelijk van PF- en HQT-gemedieerde effecten op ox-LDL-geïnduceerde macrophage-dysfunctie en AMPK-gerelateerde signalering. Onder de geteste omstandigheden beschermde PF RAW264.7-cellen tegen ox-LDL-geïnduceerde lipide-metabole dysfunctie, inflammatie, oxidatieve stress, mitochondriële dysfunctie en apoptose, waarbij PF en HQT directioneel vergelijkbare veranderingen produceerden in macrophage-gerelateerde eindpunten.
Inleiding
Cardiovasculaire aandoeningen zijn wereldwijd een belangrijke oorzaak van morbiditeit en mortaliteit, waarbij atherosclerose (AS) de belangrijkste pathologische basis vormt voor veel cardiovasculaire stoornissen1,2,3,4. AS wordt gekenmerkt door lipideaccumulatie5, chronische inflammatie6 en de progressieve vorming van plaques binnen de arteriële wand7. De initiatie en progressie ervan omvatten endotheeldisfunctie, oxidatieve stress, ontregeld lipidenmetabolisme en aanhoudende immuunactivatie. Geoxideerd low-density lipoprotein (ox-LDL) bevordert endotheelactivatie en de expressie van adhesiemoleculen en chemokines, zoals monocyten-chemoattractant protein-1 (MCP-1), waardoor de rekrutering van monocyten naar de arteriële intima wordt gefaciliteerd8. Na differentiatie tot macrofagen nemen deze cellen ox-LDL op via scavengerreceptoren en ontwikkelen zij zich geleidelijk tot lipiderijke schuimcellen9. Dit proces gaat gepaard met een verhoogde productie van reactieve zuurstofspecies (ROS) en pro-inflammatoire cytokinen10, die de vasculaire inflammatie en oxidatieve schade verder verergeren. Onder deze inflammatoire mediatoren draagt tumornecrosefactor-alfa (TNF-α) bij aan schuimcelvorming en inflammatoire signalering11, mede door activatie van de nuclear factor kappa B (NF-κB)-route. In rusttoestand wordt NF-κB in het cytoplasma gehouden door interactie met inhibitor of NF-κB alfa (IκB-α)12. Bij stimulatie wordt IκB-kinase (IKK) geactiveerd, wat leidt tot de degradatie van IκB-α en de daaropvolgende translocatie van NF-κB naar de kern13, waar het de transcriptie van inflammatoire genen bevordert, waaronder TNF-α, interleukine-1 bèta (IL-1β) en interleukine-6 (IL-6)14. Ondanks vooruitgang in lipidenverlagende en anti-inflammatoire therapieën blijft er een aanzienlijk residueel cardiovasculair risico bestaan, wat de noodzaak onderstreept om aanvullende therapeutische strategieën te ontwikkelen die gelijktijdig meerdere pathologische processen bij AS targeten.
Formuleringen van de Traditionele Chinese Geneeskunde (TCG) bevatten meerdere bioactieve bestanddelen die therapeutische effecten kunnen uitoefenen via interacties met diverse moleculaire targets en signaleringspaden15,16. Deze modus van werking met meerdere componenten en targets kan potentiële voordelen bieden voor het beheer van complexe ziekten zoals AS. Huangqin Tang (HQT) is een klassieke TCG-formule bestaande uit vier medicinale kruiden: Scutellaria baicalensis (Huangqin), Paeonia lactiflora (Baishao), Glycyrrhiza uralensis (Gancao) en Ziziphus jujuba (Dazao)17,18. Er is gerapporteerd dat bioactieve bestanddelen afgeleid van deze kruiden het lipidenmetabolisme reguleren, inflammatoire reacties verlichten en oxidatieve stress verminderen19. De moleculaire targets en signaleringspaden die ten grondslag liggen aan de potentiële anti-atherosclerotische effecten van HQT zijn echter nog niet volledig begrepen.
In de huidige studie werd netwerkfarmacologie gecombineerd met in vitro experimenten om een methode te ontwikkelen voor het onderzoeken van de potentiële mechanismen die ten grond liggen aan de beschermende effecten van HQT en een van de bioactieve bestanddelen ervan, paeoniflorine (PF), tegen ox-LDL-geïnduceerde dysfunctie van macrofagen. Eerst werd een netwerkfarmacologische analyse uitgevoerd om kandidaatverbindingen, therapeutische doelen en signaleringspaden te identificeren die geassocieerd zijn met HQT en AS. Op basis van de voorspelde betrokkenheid van AMP-geactiveerd proteïnekinase (AMPK)-signalering en eerder gepubliceerde bewijzen werd PF geselecteerd voor experimentele validatie. De effecten ervan op lipideaccumulatie, cholesterolefflux, ontstekingsreacties, energiemetabolisme, mitochondriale functie, oxidatieve stress, apoptose en fenotypische markers van macrofagen werden geëvalueerd in RAW264.7-cellen. HQT en PF werden daarnaast vergeleken onder niet-cytotoxische omstandigheden. Verder werden farmacologische inhibitie en small interfering RNA (siRNA)-gemedieerde knockdown van AMPK gebruikt om te onderzoeken of AMPK-afhankelijke regulatie van ATP-binding cassette transporter A1 (ABCA1) en liver X receptor alpha (LXRα)/NF-κB-signalering bijdroegen aan de beschermende effecten van PF. Deze geïntegreerde aanpak biedt een kader voor het evalueren van HQT- en PF-gemedieerde effecten op ox-LDL-geïnduceerde dysfunctie van macrofagen en het bepalen of deze methode geschikt is voor het onderzoeken van AMPK-gerelateerde mechanismen in soortgelijke in vitro modellen.
Protocol
GSE100927 werd geanalyseerd als een publiek toegankelijke, niet-identificeerbare secundaire dataset. Er zijn geen deelnemers geworven, er zijn geen nieuwe menselijke specimens verzameld en er is geen toegang gekregen tot directe persoonlijke identificatiegegevens; daarom was geen aanvullende goedkeuring van een institutionele toetsingscommissie of geïnformeerde toestemming vereist. De celexperimenten maakten uitsluitend gebruik van een gevestigde muizenmacrofaag-cellijn en betroffen geen levende dieren, primaire dierlijke weefsels, menselijke deelnemers of primaire menselijke materialen; daarom was institutionele ethische goedkeuring voor menselijke of dierlijke proeven niet van toepassing.
Identificatie van bioactieve HQT-verbindingen en targets
De Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform (TCMSP), PubMed, China National Knowledge Infrastructure (CNKI) en UniProt-databasen werden geraadpleegd via de versies die beschikbaar waren op 16 juli 2026. Scutellaria baicalensis Georgi, Paeonia lactiflora Pall., Glycyrrhiza uralensis Fisch. en Ziziphus jujuba Mill. werden afzonderlijk gezocht in de TCMSP-database met behulp van hun Latijnse, Engelse en Chinese medicinale namen. Verbindingen met een orale biobeschikbaarheid (OB) van ≥30% en een drug-likeness (DL)-waarde van ≥0,18 werden behouden. Dubbele verbindingen die in meer dan één botanisch materiaal waren geïdentificeerd, werden samengevoegd op basis van de naam van de verbinding en de bijbehorende TCMSP-identificatiecode.
PubMed werd doorzocht met de termen (“Huangqin Tang” OF “Huang-Qin-Tang” OF “Huang Qin Tang”) EN (constituent OF compound OF ingrediënt OF fytochemische stof OF target), en CNKI werd doorzocht met “Huangqin Tang” EN (“chemical constituents” OF “active ingredients” OF “pharmacological targets”). Artikelen gepubliceerd tot en met 16 december 2025 werden gescreend. Verbindingen of targets werden alleen opgenomen wanneer hun associatie met HQT of een van de vier botanische componenten daarvan expliciet was gerapporteerd. Reviews zonder traceerbaar primair bewijs, onbenoemde verbindingen en voorspelde targets zonder experimentele ondersteuning of ondersteuning uit databases werden uitgesloten.
Proteïne-targets werden in kaart gebracht met behulp van de identifier-mapping tool in de UniProt-database, waarbij het organisme beperkt was tot Homo sapiens (taxon-identifier 9606). Goedgekeurde menselijke gensymbolen werden behouden, terwijl niet-gemapte en dubbele vermeldingen werden verwijderd. De gededupliceerde lijst met verbindingen-target-koppelingen werd geïmporteerd in de netwerkvisualisatiesoftware Cytoscape (versie 3.7.2), waarin het HQT-verbindingen-target-netwerk werd geconstrueerd.
Identificatie en bioinformatische analyse van AS-geassocieerde targets
De databanken GeneCards, Online Mendelian Inheritance in Man (OMIM), Comparative Toxicogenomics Database (CTD) en Gene Expression Omnibus (GEO) werden geraadpleegd via de versies die beschikbaar waren op 16 juli 2026. De term “atherosclerosis” werd gebruikt om te zoeken in GeneCards, OMIM en CTD. Genen die via GeneCards werden opgehaald met een Relevance Score van ≥1.163, wat overeenkomt met de mediane score van alle opgehaalde records, werden behouden. Alleen direct gedocumenteerde AS-geassocieerde genen uit OMIM en CTD werden opgenomen.
De GSE100927 series matrix, het monster-annotatiebestand en het GPL17077 platform-annotatiebestand werden gedownload van GEO. Alle 104 menselijke monsters van perifere slagaders werden geclassificeerd als AS of Controle op basis van de fenotype-metadata van de repository, en er werden geen monsters uitgesloten op basis van de arteriële locatie.
Bioinformatische analyses werden uitgevoerd met de statistische software R (versie 4.3.2) met het limma-pakket (versie 3.58.1), het ggplot2-pakket (versie 3.4.4), het ComplexHeatmap-pakket (versie 2.18.0), het clusterProfiler-pakket (versie 4.10.1) en het org.Hs.eg.db-pakket (versie 3.18.0). Probes werden geannoteerd met behulp van het annotatiebestand van het GPL17077-platform, en probes zonder goedgekeurde gensymbolen werden verwijderd. Meerdere probes die aan hetzelfde gen waren gekoppeld, werden gemiddeld met de avereps-functie. Een log2(x + 1)-transformatie werd alleen toegepast wanneer het 99ste percentiel 100 overschreed; anders werden de verstrekte logaritmische waarden behouden. Arrays werden genormaliseerd met de kwantielmethode.
Monsters werden gecodeerd als “Control” en “AS”, en er werd een designmatrix zonder intercept gegenereerd met behulp van model.matrix(~0 + group). Lineaire modellen werden gefit met de functies lmFit, makeContrasts, contrasts.fit en eBayes. Alle genen werden geëxtraheerd met topTable(number = Inf, adjust.method = “BH”). Differentieel tot expressie gebrachte genen werden gedefinieerd als genen met een absolute log2 fold change groter dan 1 en een nominale p-waarde <0,05, terwijl de volgens Benjamini–Hochberg gecorrigeerde p-waarden in de volledige output werden behouden.
Volcano plots werden gegenereerd met behulp van log2 fold-change waarden en −log₁₀ nominale p waarden. Heatmaps werden opgesteld na rijgewijze z-score standaardisatie van de geselecteerde genen. Voor alle monsters werden identieke preprocessings- en visualisatie-instellingen toegepast.
Genen verkregen uit GeneCards, OMIM, CTD en GEO werden gestandaardiseerd met behulp van de UniProt-database. Gen-identificatoren werden omgezet in goedgekeurde gen-symbolen in hoofdletters, en lege, niet-gemapte en dubbele vermeldingen werden binnen elke gegevensbron verwijderd. Consensus AS-geassocieerde targets werden gedefinieerd als genen die in ten minste twee van de vier gegevensbronnen waren geïdentificeerd. De intersect() functie in R werd gebruikt om genen te identificeren die werden gedeeld met de gestandaardiseerde HQT-targetset.
De overlappende HQT-AS-targets werden ingediend bij de STRING-database (versie 12.0), geraadpleegd op 16 december 2025. De analyse werd beperkt tot Homo sapiens, de minimale interactiescore werd ingesteld op 0,700, alle bewijskanalen werden behouden en er werden geen interactoren van de eerste of tweede schil toegevoegd. De interactietabel werd geëxporteerd en geïmporteerd in Cytoscape als een ongericht netwerk. Zelflussen en dubbele randen werden verwijderd, en waarden voor graad, betweenness en closeness centrality werden berekend met de CentiScaPe-plugin (versie 2.2). Hubgenen werden gedefinieerd als genen waarbij alle drie de centraliteitsmaten de overeenkomstige netwerkgemiddelden overschreden.
Goedgekeurde gensymbolen werden omgezet naar Entrez-identificatoren met behulp van de bitr-functie. Niet-gekoppelde en dubbele identificatoren werden verwijderd, en alle succesvol gekoppelde genen in de geannoteerde dataset werden gebruikt als achtergrond. Gene Ontology-verrijkingsanalyse voor alle ontologieën werd uitgevoerd met behulp van enrichGO (ont = “ALL”), en Kyoto Encyclopedia of Genes and Genomes-padverrijkingsanalyse werd uitgevoerd met behulp van enrichKEGG (organism = “hsa”). Er werd een Benjamini–Hochberg-correctie toegepast, en verrijkte termen met een aangepaste p-waarde <0.05 werden behouden.
De volledige scripts voor preprocessing, differentiële expressie, visualisatie en verrijking werden verstrekt als TCMSP analysis.R en Transcriptome analysis.R. Op basis van de resultaten van de netwerkanalyse en gepubliceerde bewijzen werden paeoniflorine (PF), liquiritine, baicaline, wogonoside en glycyrrhizinezuur geïdentificeerd als de belangrijkste HQT-bestanddelen20. PF werd gekozen als representatieve verbinding vanwege de gerapporteerde rollen bij het reguleren van het lipidenmetabolisme en de AMP-geactiveerde proteïnekinase-signalering.
Bereiding van het HQT-extract
Geauthenticeerde S. baicalensis Georgi, P. lactiflora Pall., G. uralensis Fisch. en Z. jujuba Mill. werden gecombineerd in een drooggewichtsverhouding van 3:2:2:3. Gedemineraliseerd water werd toegevoegd in een verhouding van 1:10 (w/v) en het mengsel werd 1 h onder reflux verhit. Het extract werd warm gefiltreerd en het residu werd voor een tweede maal geëxtraheerd met gedemineraliseerd water in een verhouding van 1:8 (w/v) gedurende 1 h, zoals eerder beschreven19. De filtraten werden samengevoegd, onder verlaagde druk bij 60°C geconcentreerd en vacuümgedroogd tot een constant gewicht; het extractierendement bedroeg 36,34%. Het gedroogde extract werd opgelost in steriel water bij een concentratie van 1 g/mL, gefiltreerd door een 0,22 µm membraan, verdeeld in aliquoten en bewaard bij −20°C tot gebruik. Experimentele concentraties werden uitgedrukt als microgrammen gedroogd extract per milliliter kweekmedium.
Celcultuur, transfectie en behandeling
RAW264.7 muizenmacrofagen werden gekweekt in high-glucose Dulbecco's modified Eagle medium, aangevuld met 10% foetaal runderserum, 100 U/mL penicilline en 100 µg/mL streptomycine bij 37°C in een bevochtigde incubator met 5% CO2. De cellen werden gesubcultured bij een confluentie van ongeveer 80%, waarbij alleen cellen tussen passage 5 en 20 na ontdooiing werden gebruikt. De identiteit van de cellijn werd geverifieerd aan de hand van het certificaat van de repository, en de celmorfologie, adhesie en groeikenmerken werden routinematig gemonitord. Alleen mycoplasma-negatieve culturen werden gebruikt. Culturen die contaminatie, abnormale groei, aanzienlijke vacuolisatie, uitgebreid debris, uitgesproken detachement of een ongelijkmatige celverdeling vertoonden, werden weggegooid.
Voor het uitschakelen van AMPKα1 werden cellen gezaaid met een dichtheid van 2 × 10⁵ cellen per well in 2 mL kweekmedium in 6-wells platen en getransfecteerd bij een confluentie van 50%–60%. In totaal 100 pmol si-AMPKα1 of non-targeting siRNA werd verdund in 125 µL serumarm medium, terwijl 5 µL van een lipide-gebaseerd transfectiereagens afzonderlijk werd verdund in 125 µL serumarm medium. Na incubatie gedurende 15 min bij kamertemperatuur werden de twee oplossingen gecombineerd en druppelsgewijs aan de cellen toegevoegd om een uiteindelijke siRNA-concentratie van 50 nM te bereiken. De si-AMPKα1-sequenties waren als volgt: sense, 5′-CCCATCTTATAGTTCAACCAT-3′, en antisense, 5′-ATGGTTGAACTATAAGATGGG-3′. Het kweekmedium werd na 6 u vervangen, en de incubatie werd voortgezet voor een totale duur van 48 u vóór de behandeling met ox-LDL en PF. De AMPKα1-knockdown werd bevestigd via qRT-PCR en western blotting, waarbij alleen experimenten die een significante reductie vertoonden ten opzichte van de negatieve-controle siRNA-groep werden opgenomen in daaropvolgende analyses.
PF, dorsomorfine en BAY 11-7082 werden klaargemaakt in dimethylsulfoxide (DMSO), terwijl HQT werd klaargemaakt in steriel water. De uiteindelijke DMSO-concentratie werd in alle behandelingsgroepen op ≤0,1% gehouden, en het overeenkomstige vehikel werd toegevoegd aan de controlegroepen.
Voor de concentratiescreening werden de cellen gedurende 24 u behandeld met PF in concentraties van 0, 1, 5, 10, 20 of 40 µM, of HQT in concentraties van 0, 12,5, 25, 50, 100 of 200 µg/mL. Vervolgens werden de celviabiliteit en AMPK-fosforylering bepaald. Op basis van deze resultaten werden 20 µM PF en 100 µg/mL HQT geselecteerd voor alle daaropvolgende experimenten.
Voor de vergelijking tussen PF en HQT bestonden de behandelgroepen uit een controlegroep, een groep met 50 µg/mL ox-LDL, een groep met ox-LDL plus 20 µM PF en een groep met ox-LDL plus 100 µg/mL HQT. Alle groepen werden 24 h geïncubeerd. Voor de farmacologische inhibitie van AMPK werd de ox-LDL plus PF-groep gedurende 1 h voorbehandeld met 10 µM dorsomorfine vóór de co-behandeling van 24 h21,22.
Voor genetische inhibitie van AMPK werden cellen gedurende 48 u getransfecteerd met si-NC of si-AMPKα1 en vervolgens toegewezen aan de groepen Control, ox-LDL, PF, of si-AMPK plus PF. De groepen PF en si-AMPK plus PF ontvingen 50 µg/mL ox-LDL samen met 20 µM PF gedurende 24 u. De ox-LDL groep ontving alleen ox-LDL, terwijl de Control groep het overeenkomstige vehikel ontving.
Om de betrokkenheid van NF-κB-signalering te evalueren, werd een aanvullende behandelgroep gedurende 1 h voorbehandeld met 10 µM BAY 11-7082 vóór blootstelling aan 50 µg/mL ox-LDL gedurende 24 h23,24,25. Vervolgens werden de ABCA1-expressie, cholesterol-efflux, lipide-accumulatie en de proporties CD86⁺ en CD206⁺ macrofagen bepaald.
Tenzij anders vermeld, werden de cellen 12–16 u voor de behandeling uitgezaaid, en werden drie replicate wells gebruikt voor elke behandelingsgroep. Elke assay werd uitgevoerd met drie onafhankelijk gekweekte celpreparaties op verschillende dagen (n = 3), behalve voor de screening van de celviabiliteit, die bestond uit vijf onafhankelijke experimenten met vijf technische replicate wells per concentratie. Technische replicates, dubbele metingen en meerdere microscopische velden werden hiërarchisch gemiddeld om één enkele waarde per onafhankelijk experiment te verkrijgen.
Alleen culturen die gelijkmatig waren gehecht en ongeveer 60%–80% confluent waren, of 50%–60% confluent voor transfectie-experimenten, werden gebruikt voor de behandeling. Essentiële materialen, software en apparatuur staan vermeld in de bijbehorende Tabel met materialen.
Celviabiliteitsassay en kwantitatieve real-time PCR
RAW264.7-cellen werden gezaaid met een dichtheid van 5 × 10³ cellen per putje in 96-wells platen en kregen de tijd om gedurende de nacht te hechten. De cellen werden 24 u behandeld met de PF- en HQT-concentraties zoals beschreven in Sectie 4. De celviabiliteit werd bepaald door het kweekmedium te vervangen door 100 µL werkoplossing van de celviabiliteitsassay, gevolgd door incubatie gedurende 2 u bij 37°C in het donker. De absorptie werd gemeten bij 450 nm.
Er werden blanco putjes met alleen reagentia meegenomen, en hun absorbantiewaarden werden van alle metingen afgetrokken. De absorbantiewaarden van vijf technische replica-putjes per concentratie werden gemiddeld. De celviabiliteit werd berekend als (absorbantie behandelde groep/absorbantie controlegroep) × 100, waarbij de onbehandelde controle werd gedefinieerd als 100%. Er werden vijf onafhankelijke experimenten uitgevoerd.
Totaal RNA werd geëxtraheerd met behulp van een fenol-guanidinium RNA-extractiereagens, en alleen monsters met A260/A280-waarden tussen 1,8 en 2,0 werden gebruikt. Eén microgram totaal RNA werd reverse getranscribeerd, en elke 20 µL kwantitatieve PCR (qPCR)-reactie bevatte 10 µL van 2× SYBR Green master mix, telkens 0,4 µL van 10 µM forward- en reverse-primers, 2 µL cDNA en 7,2 µL nuclease-vrij water.
Kwantitatieve PCR werd uitgevoerd bij 95°C gedurende 30 s, gevolgd door 40 cycli van 95°C gedurende 10 s en 60°C gedurende 30 s. Vervolgens werd een smeltcurve-analyse uitgevoerd van 65°C tot 95°C. De primersequenties waren als volgt: Prkaa1 forward, 5′-ACCAGAAGCGGTGCCGGAAAGCTGG-3′; Prkaa1 reverse, 5′-TGTAGTCGGTTTATGCAGCAACGAG-3′; Gapdh forward, 5′-CGACTTCAACAGCAACTCCCACTCTTCC-3′; en Gapdh reverse, 5′-TGGGTGGTCCAGGGTTTCTTACTCCTT-3′.
Elk monster werd in technisch triplikaat geanalyseerd en er werden controles zonder template meegenomen. Primerparen werden alleen geaccepteerd wanneer er een enkele smeltpiek werd waargenomen en er geen amplificatie werd gedetecteerd in de controles zonder template. De relatieve Prkaa1-expressie werd berekend met de 2−ΔΔCt-methode met Gapdh als referentiegen, waarbij de expressie in de si-NC-groep werd genormaliseerd naar 1.
Meting van lipidaccumulatie, ATP-spiegels en cholesterol-efflux
Voor Oil Red O-kleuring werden RAW264.7-cellen gezaaid met een dichtheid van 5 × 10⁴ cellen per well in 500 µL kweekmedium in 24-wells platen. Na de behandeling werden de cellen tweemaal gewassen met 500 µL fosfaatgebufferde zoutoplossing (PBS), gefixeerd met 500 µL 10% neutraal gebufferde formaline gedurende 20 min, tweemaal gewassen met PBS, eenmaal gespoeld met 500 µL 60% isopropanol en gekleurd met 500 µL vers bereide Oil Red O-werkoplossing gedurende 15 min bij kamertemperatuur. De gekleurde cellen werden gewassen met gedestilleerd water tot de achtergrond helder was. Van elke well werden vijf microscopische velden vastgelegd zoals beschreven in Sectie 8, en het Oil Red O-positieve gebied werd berekend als het positieve gebied gedeeld door het totale veldoppervlak × 100 met behulp van een vaste kleurdrempel. Kleuringsresultaten werden alleen geaccepteerd wanneer de controlecellen minimale kleuring vertoonden, de ox-LDL-behandelde cellen discrete intracellulaire lipidedruppels vertoonden en de extracellulaire achtergrond helder bleef. Monsters met diffuse neerslag, ongelijkmatige kleuring of uitgebreide celdetachement werden uitgesloten en de kleuringsprocedure werd herhaald.
Voor de ATP-meting werden cellen gezaaid met een dichtheid van 5 × 10⁵ cellen per well in 2 mL kweekmedium in 6-wells platen. Na de behandeling werden de cellen tweemaal gewassen met 1 mL ijskoud PBS, gelyseerd met 200 µL ATP-assay lysebuffer en gecentrifugeerd bij 12,000 × g gedurende 5 min bij 4°C. Een aliquot van 10 µL van het supernatant werd gemengd met 100 µL ATP-detectiereagens en de chemiluminescentie werd gemeten. ATP-concentraties werden berekend aan de hand van een standaardcurve. Elk lysaat werd in dubbeltoets gemeten, en drie replicate wells werden geanalyseerd in elk van drie onafhankelijke experimenten.
Voor de analyse van cholesterol-efflux werden cellen uitgezaaid met een dichtheid van 5 × 10⁴ cellen per well in 500 µL kweekmedium in 24-wells platen. Na de behandeling werden de cellen gedurende 24 h belast met 1 µg/mL NBD-cholesterol, drie keer gewassen met 500 µL PBS en 4 h geïncubeerd in 500 µL serumvrij medium dat ofwel 10 µg/mL apolipoproteïne A-I of 50 µg/mL high-density lipoprotein bevatte. De kweeksupernatanten werden verzameld en gecentrifugeerd bij 1.000 × g gedurende 5 min. De cellen werden tweemaal gewassen met PBS en gelyseerd met 200 µL lysisbuffer. De fluorescentie in de supernatanten en lysaten werd in duplo gemeten bij excitatie- en emissiegolflengten van respectievelijk 485 en 535 nm. Fluorescentiewaarden verkregen uit wells zonder NBD-cholesterol werden afgetrokken, en de cholesterol-efflux werd voor elke cholesterolacceptor berekend als de fluorescentie van het supernatant gedeeld door de som van de fluorescentie van het supernatant en het lysaat × 100.
Meting van inflammatoire cytokinen, mitochondriaal membraanpotentiaal, reactieve zuurstofspecies en apoptose
Voor de enzyme-linked immunosorbent assay (ELISA) werden RAW264.7-cellen gezaaid met een dichtheid van 5 × 10⁵ cellen per well in 2 mL kweekmedium in 6-well platen. Na 24 uur behandeling werden de kweeksupernatanten verzameld, gecentrifugeerd bij 1.000 × g gedurende 10 min bij 4°C en vervolgens direct geanalyseerd of verdeeld in aliquots en bewaard bij −80°C tot aan de analyse. Herhaalde vries-dooi-cycli werden vermeden. De concentraties van muis TNF-α, IL-6 en IL-1β werden gemeten met sandwich ELISA-kits. Alle reagentia werden voor gebruik op kamertemperatuur gebracht. Standaarden, blanks en monsters werden in dubbeltoets geladen met 100 µL per well. De wells werden na elke antilichaamincubatie vijf keer gewassen met 300 µL wasbuffer. Kleurontwikkeling werd bereikt met tetramethylbenzidine-substraat, de reactie werd gestopt volgens de instructies van de fabrikant en de absorbentie werd gemeten bij 450 nm. Cytokineconcentraties werden berekend aan de hand van vier-parameter logistische standaardcurven en uitgedrukt in pg/mL. Metingen met variatiecoëfficiënten in dubbeltoets groter dan 15% werden herhaald, en monsters die het meetbereik van de assay overschreden, werden verdund vóór heranalyse.
Voor de analyse van het mitochondriale membraanpotentiaal werden cellen gezaaid met een dichtheid van 5 × 10⁴ cellen per putje in 500 µL kweekmedium in 24-wells platen. Na de behandeling werden de cellen tweemaal gewassen en gedurende 20 min bij 37°C in het donker geïncubeerd met 500 µL JC-1 werkoplossing. De cellen werden vervolgens tweemaal gewassen met kleuringsbuffer, waarna de fluorescentie van rode aggregaten en groene monomeren werd vastgelegd vanuit identieke microscopische velden bij excitatie/emissiegolflengten van respectievelijk 525/590 nm en 490/530 nm. Vervolgens werd de achtergrondgecorrigeerde groene-rood fluorescentieverhouding berekend.
Voor de analyse van intracellulaire reactieve zuurstofspecies (ROS) werden cellen gezaaid met een dichtheid van 5 × 10⁴ cellen per putje in 24-wells platen. Na de behandeling werden de cellen twee keer gewassen met serumvrij medium en gedurende 2 h bij 37°C in het donker geïncubeerd met 10 µL 2′,7′-dichloordihydrofluoresceïne-diacetaat verdund in 200 µL kweekmedium. De platen werden tijdens de incubatie elke 5 min voorzichtig geschud. De cellen werden vervolgens drie keer gewassen, waarna de fluorescentie werd gemeten bij excitatie- en emissiegolflengten van respectievelijk 488 en 525 nm.
Voor de apoptoseanalyse werden cellen uitgezaaid met een dichtheid van 5 × 10⁴ cellen per well in 24-wells platen. Na de behandeling werden de cellen twee keer gewassen, 20 min gefixeerd met 4% paraformaldehyde, drie keer gewassen en 10 min gepermeabiliseerd met 0,1% Triton X-100 in PBS. Er werd in totaal 250 µL terminal deoxynucleotidyl transferase dUTP nick-end labeling (TUNEL) reactiemengsel toegevoegd, waarna de cellen 60 min bij 37°C werden geïncubeerd in een bevochtigde donkere kamer. Na drie wasbeurten werden de kernen 5 min tegengekleurd met 4′,6-diamidino-2-phenylindole (DAPI). In elk experiment werd een negatieve controle opgenomen zonder terminal deoxynucleotidyl transferase.
Behouden mitochondriaal membraanpotentiaal werd aangetoond door voornamelijk punctaat rode JC-1 fluorescentie, terwijl membraandepolarisatie werd aangetoond door een toename van diffuse groene fluorescentie. ROS-beelden werden alleen geaccepteerd wanneer de groene fluorescentie intracellulair was en vrij van precipitaten of signaalverzadiging. Apoptosekleuring werd alleen geaccepteerd wanneer de rode fluorescentie voornamelijk nucleair was en de controle zonder enzym een minimaal achtergrondsignaal vertoonde.
Beeldacquisitie en Kwantitatieve Analyse
Bright-field- en fluorescentiebeelden werden verkregen met een geïnverteerde fluorescentiemicroscoop, uitgerust met een digitale camera en een 20× objectief. Er werden vijf niet-overlappende velden per well verzameld, bestaande uit één centraal veld en vier perifere velden. Gebieden met krassen, well-randen, losgelaten cellagen of groot debris werden uitgesloten voordat de behandelingsidentiteiten bekend werden gemaakt. De automatische belichtings- en gain-instellingen waren uitgeschakeld. De verlichtingsintensiteit, belichtingstijd, gain, het objectief en de afmetingen van de beelden werden vastgesteld met behulp van representatieve Control- en ox-LDL-wells om ervoor te zorgen dat het sterkste fluorescentiesignaal verzadigingsvrij bleef. Identieke instellingen voor beeldverwerving werden gehandhaafd voor alle behandelingsgroepen binnen elk onafhankelijk experiment. Gepaarde rode en groene fluorescentiekanalen werden verkregen zonder de microscooptafel te verplaatsen. Niet-gecorrigeerde beelden werden geanalyseerd met ImageJ-beeldanalyse-software, terwijl de onderzoeker geblinderd bleef voor de toewijzing van de behandelingen. Het achtergrondsignaal van een celvrije regio werd afgetrokken, en drempelwaarden voor de beelden werden vastgesteld met behulp van representatieve Control- en ox-LDL-beelden. Dezelfde drempelwaarden werden gedurende elk experiment toegepast. Voor de presentatie van figuren werden uitsluitend uniforme aanpassingen over het gehele beeld toegepast. JC-1-resultaten werden uitgedrukt als de verhouding tussen groene en rode fluorescentie. Signalen van reactieve zuurstofspecies en apoptose werden uitgedrukt als achtergrond-gecorrigeerde gemiddelde fluorescentie, genormaliseerd naar het geanalyseerde oppervlak, waarbij de gemiddelde waarde van de Control-groep werd genormaliseerd naar 1 voor relatieve analyses. Vijf microscopische velden werden gemiddeld om één waarde per well te verkrijgen, en de waarden van drie wells werden gemiddeld om één waarde per onafhankelijk experiment te genereren.
Western Blot-analyse
RAW264.7-cellen werden gezaaid met 5 × 10⁵ cellen per well in 2 mL kweekmedium in 6-wells platen, waarbij uit elke well één proteïnelysaat werd bereid. Voor de extractie van whole-cell proteïnen werden de cellen twee keer gewassen met ijskoude PBS, 30 min op ijs gelyseerd met radioimmunoprecipitation assay (RIPA) buffer aangevuld met protease- en fosfataseremmers, en gecentrifugeerd bij 12.000 × g gedurende 15 min bij 4°C. Voor de extractie van nucleaire proteïnen werden de cellen gesuspendeerd in een buffer bestaande uit 10 mM HEPES, 10 mM KCl, 1,5 mM MgCl2, 0,5 mM dithiothreïtol en protease/fosfataseremmers, en gedurende 15 min op ijs geïncubeerd. Een niet-ionisch detergent werd toegevoegd tot een eindconcentratie van 0,5%, gevolgd door kortstondig vortexen en centrifugeren bij 700 × g gedurende 5 min bij 4°C. Het nucleaire pellet werd gedurende 30 min op ijs geëxtraheerd met periodiek mengen in een buffer bestaande uit 20 mM HEPES, 420 mM NaCl, 1,5 mM MgCl2, 0,2 mM EDTA, 25% glycerol, 0,5 mM dithiothreïtol en protease/fosfataseremmers. Het extract werd vervolgens gecentrifugeerd bij 14.000 × g gedurende 15 min bij 4°C.
Eiwitconcentraties werden bepaald met de bicinchonininezuur-assay. Gelijke hoeveelheden eiwit (25–30 µg) werden in elke lane geladen, 5 min verhit bij 95°C, gescheiden op 8%–12% natriumdodecylsulfaat-polyacrylamidegels en gedurende 90 min bij 100 V onder koelingscondities overgebracht op 0,45 µm polyvinylideenfluoride-membranen. Membranen met totale eiwitten werden geblokkeerd met 5% vetvrije melk, terwijl membranen met gefosforyleerde eiwitten gedurende 1 u werden geblokkeerd met 5% runderserumalbumine geprepareerd in Tris-gebufferde zoutoplossing met polysorbaat 20. De membranen werden overnacht bij 4°C geïncubeerd met primaire antilichamen tegen AMPK, gefosforyleerd AMPK, BAX, BCL-2, caspase-3, ABCA1, p65, gefosforyleerd p65, LXRα, IκB-α, gefosforyleerd IκB-α en histon H3 bij een verdunning van 1:1.000, behalve voor histon H3, dat werd gebruikt bij een verdunning van 1:2.000. GAPDH- en β-actine-antilichamen werden gebruikt bij een verdunning van 1:5.000. Na incubatie met de primaire antilichamen werden de membranen drie keer 10 min gewassen en 1 u geïncubeerd met met mierikswortelperoxidase-geconjugeerde geiten-anti-konijn of geiten-anti-muis secundaire antilichamen, verdund 1:5.000. Na aanvullende wasstappen werden de eiwitbanden gedetecteerd met een enhanced chemiluminescence-detectiereagens. De kortste belichtingstijd die verzadigingsvrije banden opleverde voor alle doeleiwitten werd gekozen, en identieke belichtings- en beeldacquisitie-instellingen werden gehanteerd voor alle groepen op hetzelfde membraan.
Proteïnebanden werden gekwantificeerd met ImageJ-beeldanalysesoftware na aftrekking van de lokale achtergrond. Totaal AMPK, ABCA1, BAX, BCL-2, caspase-3, IκB-α en gefosforyleerd IκB-α werden genormaliseerd ten opzichte van GAPDH of β-actine. De ratio's van gefosforyleerd AMPK ten opzichte van totaal AMPK en gefosforyleerd p65 ten opzichte van totaal p65 werden berekend. De niveaus van nucleair LXRα, p65 en gefosforyleerd p65 werden genormaliseerd ten opzichte van histon H3, waarbij de gemiddelde waarde van de Control- of si-NC-groep binnen elk onafhankelijk experiment werd genormaliseerd naar 1. Alleen blots met discrete banden op de verwachte molecuulgewichten, een lage achtergrond, onverzadigde signalen en vergelijkbare loading controls werden in de analyse opgenomen. Membranen met vervormde lanes, onvolledige proteïneoverdracht, overmatige achtergrond of signaalverzadiging werden opnieuw verwerkt of uitgesloten. Er werden drie onafhankelijke experimenten uitgevoerd met afzonderlijk bereide proteïnelysaten.
Cell Thermal Shift Assay
RAW264.7-cellen werden gezaaid met 3 × 10⁶ cellen in 10 mL kweekmedium in 100 mm kweekschalen en gedurende één nacht geïncubeerd. Cellen werden geoogst, tweemaal gewassen met ijskoud PBS, 30 min op ijs gelyseerd in PBS bevattende 0,4% NP-40 en protease-/fosfataseremmers, en gecentrifugeerd bij 20.000 × g gedurende 20 min bij 4°C. De geklaarde lysaten werden aangepast naar een eiwitconcentratie van 2 mg/mL. Gelijke volumes geklaard lysaat werden gedurende 1 u bij kamertemperatuur geïncubeerd met ofwel 20 µM PF of 0,1% DMSO. Elk monster werd verdeeld in aliquoten van 50 µL en 3 min verhit bij 37°C, 41°C, 45°C, 49°C, 53°C, 57°C, 61°C, 65°C, 69°C of 73°C. Monsters werden onmiddellijk 3 min gekoeld bij 4°C en gecentrifugeerd bij 20.000 × g gedurende 20 min bij 4°C. Gelijke volumes van de oplosbare supernatanten werden geanalyseerd via western blotting om AMPK en gefosforyleerd AMPK te detecteren. Het signaal verkregen bij elke temperatuur werd genormaliseerd ten opzichte van het overeenkomstige signaal bij 37°C, dat werd gedefinieerd als 100%. De abundantie van oplosbaar eiwit werd uitgezet als functie van de temperatuur, en de volledige assay werd drie keer herhaald met onafhankelijk gekweekte cellen. Alleen experimenten die een detecteerbare referentieband bij 37°C, progressief verlies van oplosbaar AMPK bij stijgende temperatuur en de afwezigheid van ernstige vervorming van de lanes of anomale toenames van oplosbaar eiwit bij de hoogste temperaturen vertoonden, werden in de analyse meegenomen.
Flowcytometrie-analyse
RAW264.7-cellen werden gezaaid met 5 × 10⁵ cellen per well in 2 mL cultuurmedium in 6-wells platen. Na de behandeling werden de cellen twee keer gewassen met ijskoude PBS en voorzichtig losgehaald met een celscraper in PBS bevattend 2% foetaal runderserum en 2 mM EDTA. Celsuspensies werden gecentrifugeerd bij 400 × g gedurende 5 min bij 4°C, twee keer gewassen met PBS en aangepast naar een concentratie van ongeveer 1 × 10⁶ cellen per monster. Cellen werden gedurende 20 min bij kamertemperatuur in het donker gekleurd met een fixeerbare amine-reactieve levensvatbaarheidsdye. Na het wassen werden Fc-receptoren geblokkeerd met een anti-muis CD16/32-antilichaam gedurende 15 min bij 4°C. Fluorochroom-geconjugeerde antilichamen tegen CD45, CD11b, F4/80, CD86 en CD206 werden toegevoegd in een hoeveelheid van 5 µL per antilichaam per 1 × 10⁶ cellen, waarna de cellen 30 min bij 4°C in het donker werden geïncubeerd.
Na de antilichaamkleuring werden de cellen tweemaal gewassen, geresuspendeerd in 300 µL kleuringsbuffer en geanalyseerd middels flowcytometrie. Voor elk monster werden minstens 50.000 totale events en, indien mogelijk, minstens 20.000 levensvatige CD45⁺CD11b⁺F4/80⁺ events verzameld. Ongekleurde controles, enkelvoudig gekleurde compensatiecontroles en fluorescence-minus-one controles voor CD86 en CD206 werden meegenomen. Dezelfde compensatiematrix werd toegepast op alle behandelingsgroepen binnen elk experiment. Debris werd uitgesloten op basis van forward- en side-scatter kenmerken, en doubletten werden uitgesloten met behulp van forward-scatter area versus forward-scatter height. Viability dye-negatieve cellen werden geïdentificeerd, CD45⁺ cellen werden gegated en macrofagen werden gedefinieerd als CD11b⁺F4/80⁺ cellen. CD86⁺ en CD206⁺ cellen werden gekwantificeerd binnen de macrofaag-gate met behulp van drempelwaarden die waren vastgesteld op basis van de bijbehorende fluorescence-minus-one controles. Dezelfde gating-hiërarchie werd toegepast op alle monsters. Van elk van de drie replica-wells werd één gekleurde celsuspensie bereid, en de percentages van de drie wells werden gemiddeld om één waarde per onafhankelijk experiment te genereren. Het experiment werd drie keer herhaald met onafhankelijk gekweekte cellen.
Veiligheid en afvalverwerking
Alle celkweekprocedures, de omgang met ox-LDL en de verwerking van celafgeleide materialen werden uitgevoerd in een biologische veiligheidskast klasse II, overeenkomstig de praktijken voor biosafety level 2. Tijdens alle procedures werden laboratoriumjassen, handschoenen en oogbescherming gedragen. Werkoppervlakken en apparatuur werden na gebruik gedecontamineerd. Formaldehyde en paraformaldehyde werden met de nodige voorzorgsmaatregelen behandeld vanwege hun toxiciteit en potentiële carcinogeniteit. Fixatievloeistoffen, Oil Red O-oplossingen, DMSO-bevattende oplossingen en fluorescente kleuringsoplossingen werden gehanteerd met gebruikmaking van geschikte persoonlijke beschermingsmiddelen en adequate ventilatie. Fixatievloeistoffen, kleuringsoplossingen, DMSO-bevattende oplossingen en ox-LDL-bevattende kweekmedia werden afzonderlijk ingezameld en afgevoerd als gevaarlijk chemisch afval conform de institutionele regelgeving. Celbevattende kweekmedia, gecontamineerde verbruiksartikelen en flowcytometrie-monsters werden behandeld als biologisch afval. Vloeibaar biologisch afval werd gedesinfecteerd met vers bereid 10% natriumhypochloriet gedurende ten minste 30 min, en vast biologisch afval werd geautoclaveerd vóór verwijdering conform de institutionele biosafety-procedures.
Statistische Analyse
Alle statistische analyses werden uitgevoerd met de statistische software GraphPad Prism (versie 10.1.2). Gegevens worden weergegeven als het gemiddelde ± standaarddeviatie. De waarde van n representeert het aantal onafhankelijke experimenten in plaats van het aantal technische replica-wells, instrumentmetingen of microscopische velden. Hiërarchisch gemiddelde waarden verkregen uit elk onafhankelijk experiment, zoals beschreven in de voorgaande secties, werden gebruikt voor alle statistische analyses. Vergelijkingen tussen twee groepen werden uitgevoerd met een ongepaarde tweezijdig Student's t-test. Vergelijkingen tussen drie of meer groepen werden uitgevoerd met een één-weg variantieanalyse gevolgd door de multiple-comparisons test van Tukey. Alle statistische tests waren tweezijdig en een p-waarde <0,05 werd beschouwd als statistisch significant.
Resultaten
Actieve verbindingen van HQT en hun doelwitten
In totaal werden 137 kandidaat bioactieve verbindingen uit HQT geïdentificeerd door screening en integratie van gegevens afkomstig uit de TCM Systems Pharmacology-database. Nadat dubbele vermeldingen waren verwijderd, bleven 391 unieke vermeende targets over die geassocieerd waren met deze verbindingen. Vervolgens werd een HQT–verbinding–target interactienetwerk geconstrueerd met behulp van Cytoscape versie 3.7.2, zoals weergegeven in Figuur 1.
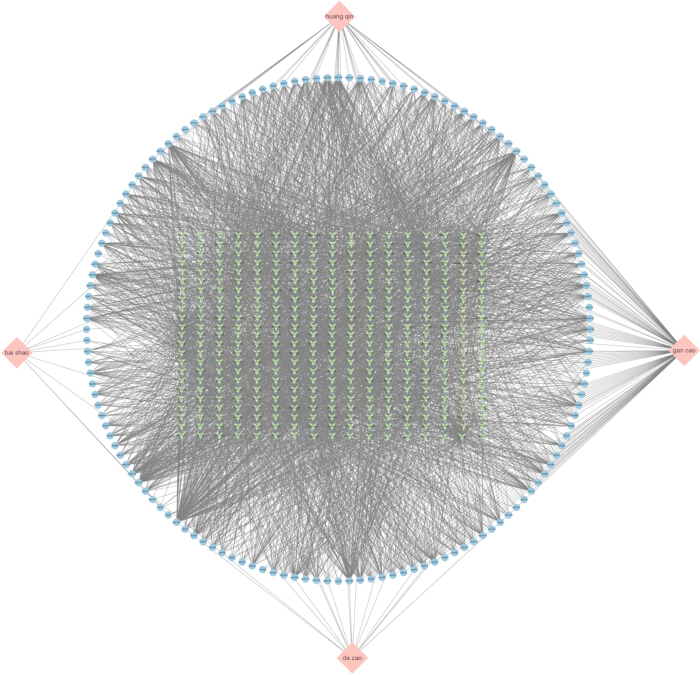
Figuur 1. Voorspeld interactienetwerk van de bestanddelen van Huangqin Tang en vermeende targets. Netwerk dat de voorspelde interacties toont tussen de vier kruidcomponenten van Huangqin Tang (HQT), kandidaat bioactieve bestanddelen en vermeende moleculaire targets. Roze ruitvormige knopen vertegenwoordigen de vier kruidcomponenten, blauwe cirkelvormige knopen vertegenwoordigen kandidaat verbindingen en groene knopen vertegenwoordigen voorspelde targets. Verbindingslijnen geven voorspelde associaties tussen kruid-verbinding of verbinding-target aan. Klik hier om een grotere versie van deze figuur te bekijken.
Identificatie van targets geassocieerd met HQT-interventie bij AS
Genexpressiegegevens van de GSE100927-dataset werden verkregen uit de Gene Expression Omnibus-database. Differentiële expressieanalyse identificeerde 1.513 significant upgereguleerde genen en 922 significant downgereguleerde genen in atherosclerotische arteriële monsters vergeleken met controle-arteriële monsters. De overeenkomstige volcano plot en heatmap worden respectievelijk getoond in Figuur 2A en Figuur 2B. AS-gerelateerde targets werden vervolgens opgehaald uit de GeneCards-, Online Mendelian Inheritance in Man- en Comparative Toxicogenomics-databases. Met een relevantiescore-drempelwaarde van ≥1,163 werden 600 potentiële targets verkregen uit GeneCards, terwijl er respectievelijk 188 en 64 targets werden opgehaald uit de Online Mendelian Inheritance in Man- en Comparative Toxicogenomics-databases, zoals samengevat in Figuur 2C. Integratie van de uit de databases afgeleide targets met de differentieel tot expressie gebrachte genen identificeerde 29 AS-geassocieerde targets die door ten minste twee databronnen werden ondersteund. Deze targets werden vervolgens vergeleken met de voorspelde targets van HQT, wat resulteerde in 12 overlappende targets die werden beschouwd als kandidaattargets waarlangs HQT zijn effecten op AS kan uitoefenen (Figuur 2D).
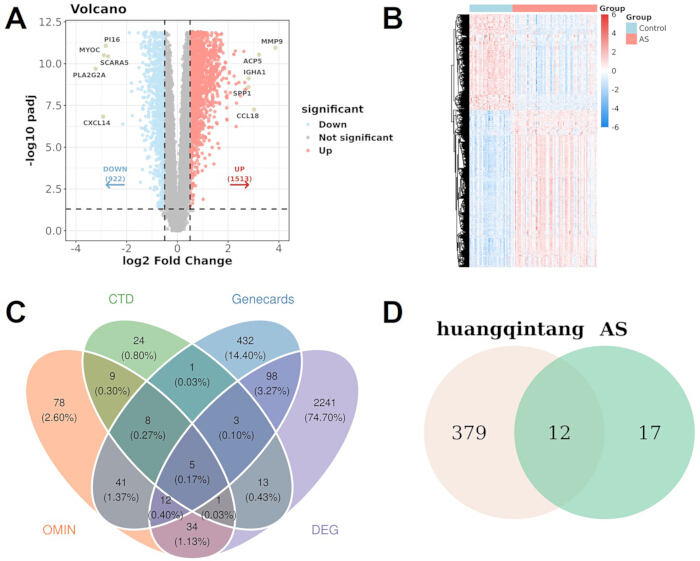
Figuur 2. Identificatie van atherosclerose-geassocieerde genen en hun overlap met voorspelde Huangqin Tang-targets. (A) Volcano plot die differentieel tot expressie gebrachte genen (DEGs) laat zien tussen atherosclerose (AS) en controle-arteriële monsters in de GSE100927-dataset. Rode en blauwe punten representeren respectievelijk opgereguleerde en neergereguleerde genen, en grijze punten representeren genen die niet significant differentieel tot expressie waren gebracht. (B) Heatmap die de expressiepatronen van DEGs in controle- en AS-monsters laat zien. (C) Venn-diagram dat de overlap laat zien tussen AS-geassocieerde genen verkregen uit de Comparative Toxicogenomics Database, GeneCards, Online Mendelian Inheritance in Man en de GSE100927 DEG-analyse. (D) Venn-diagram dat de overlap laat zien tussen voorspelde HQT-targets en AS-geassocieerde targets die uit ten minste twee bronnen in paneel C zijn behouden. Klik hier om een grotere versie van deze figuur te bekijken.
Proteïne-proteïne interactienetwerk en functionele verrijkingsanalyses van de kandidaat-targets
Om de interacties en biologische relevantie van de 12 overlappende targets te karakteriseren, werd een proteïne-proteïne interactie (PPI) netwerk geconstrueerd met behulp van de STRING-database en vervolgens gevisualiseerd en geanalyseerd in Cytoscape. Het netwerk bevatte verschillende targets die nauw verbonden waren met lipidenmetabolisme, vasculaire inflammatie en AS, waaronder NOS3, OLR1, ALOX5, SPP1, ESR1, IL10, TNF en VCAM1 (Figuur 3A). Grotere en donkerdere knooppunten vertegenwoordigden targets met een groter topologisch belang binnen het netwerk, wat suggereert dat deze proteïnen mogelijk relatief centrale posities innemen in het potentiële targetnetwerk van HQT tegen AS. Om de biologische functies en signaleringspaden die geassocieerd zijn met deze targets verder te karakteriseren, werden Gene Ontology (GO) en Kyoto Encyclopedia of Genes and Genomes (KEGG) verrijkingsanalyses uitgevoerd. GO biologisch proces (BP) analyse toonde aan dat de targets voornamelijk geassocieerd waren met steroid metabole processen, reacties op steroïdhormonen en nutriëntenniveaus, en de regulatie van lipidenhomeostase (Figuur 3B). GO cellulaire component (CC) analyse wees op een predominante verrijking in membraanvlotten en gerelateerde membraanmicrodomeinen (Figuur 3C), terwijl GO moleculaire functie (MF) analyse verrijking onthulde in low-density lipoprotein particle receptor activiteit, lipoprotein particle receptor activiteit, protease binding, cytokine activiteit, nucleaire receptor activiteit, ligand-gemoduleerde transcriptiefactor activiteit, cargo receptor activiteit, transcriptie coregulator binding, nucleaire receptor binding en integrine binding (Figuur 3D). KEGG-padanalyse demonstreerde verder een significante verrijking in paden gerelateerd aan lipidenmetabolisme, AS en metabole regulatie, waaronder het Lipid and Atherosclerosis-pad, het advanced glycation end product–receptor for advanced glycation end product (AGE–RAGE) signaleringspad bij diabetische complicaties en het AMPK-signaleringspad (Figuur 3E). Collectief gaven het PPI-netwerk en de verrijkingsanalyses aan dat de kandidaat-targets mogelijk participeren in de regulatie van lipidenhomeostase, inflammatoire signalering en energiemetabolisme. In het bijzonder leverde de verrijking van het AMPK-signaleringspad een rationale voor het vervolgens in vitro onderzoeken van AMPK-gerelateerde effecten van PF.
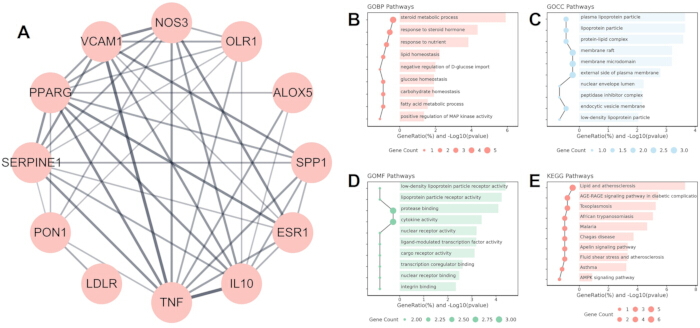
Figuur 3. Proteïne-proteïne-interactienetwerk en functionele verrijkingsanalyse van overlappende targets van Huangqin Tang en atherosclerose. (A) Proteïne-proteïne-interactienetwerk van de overlappende targets tussen HQT en AS. Knopen vertegenwoordigen proteïnen en randen vertegenwoordigen voorspelde of gedocumenteerde proteïne-proteïne-associaties. (B) Gene Ontology-verrijkingsanalyse van biologische processen. (C) Gene Ontology-verrijkingsanalyse van cellulaire componenten. (D) Gene Ontology-verrijkingsanalyse van moleculaire functies. (E) Kyoto Encyclopedia of Genes and Genomes pathway-verrijkingsanalyse. De puntgrootte vertegenwoordigt het aantal verrijkte genen en de horizontale balken vertegenwoordigen de overeenkomstige verrijkingssignificantie en genratio, zoals aangegeven op de assen. Klik hier om een grotere versie van deze figuur te bekijken.
PF en HQT activeren AMPK en oefenen beschermende effecten uit tegen ox-LDL-geïnduceerde dysfunctie van macrofagen
Om geschikte concentraties voor daaropvolgende experimenten te bepalen, werden eerst de effecten van PF en HQT op de levensvatbaarheid van RAW264.7-cellen geëvalueerd. Behandeling met PF bij concentraties variërend van 1 tot 40 µM had geen merkbaar effect op de levensvatbaarheid van de cellen in vergelijking met de onbehandelde controlegroep (Figuur 4A). Op soortgelijke wijze induceerde HQT bij concentraties variërend van 12,5 tot 200 µg/mL geen evidente afname van de levensvatbaarheid van de cellen (Figuur 4B). Deze resultaten gaven aan dat de geteste concentraties van PF en HQT over het algemeen goed werden getolereerd door RAW264.7-macrofagen. Vervolgens werd een Western blot-analyse uitgevoerd om de effecten van PF en HQT op AMPK-activatie te beoordelen. De totale AMPK-expressie bleef relatief stabiel tussen de verschillende behandelingsgroepen, terwijl PF de p-AMPK/AMPK-ratio op een concentratieafhankelijke wijze verhoogde. Behandeling met HQT versterkte eveneens de AMPK-fosforylering bij de geteste concentraties (Figuur 4C). Op basis van het behoud van de levensvatbaarheid van de cellen en de waargenomen activatie van AMPK werden 20 µM PF en 100 µg/mL HQT geselecteerd voor daaropvolgende vergelijkende experimenten. Oil Red O-kleuring toonde aan dat blootstelling aan ox-LDL de intracellulaire lipideaccumulatie in RAW264.7-cellen aanzienlijk verhoogde. Behandeling met ofwel PF of HQT verminderde het Oil Red O-positieve oppervlak significant in vergelijking met de ox-LDL-groep (Figuur 4D). Parallel hieraan belemmerde blootstelling aan ox-LDL zowel de ApoA-I-gemedieerde als de HDL-gemedieerde cholesteroleflux. Behandeling met PF herstelde beide vormen van cholesteroleflux significant, en HQT zorgde voor een soortgelijke verbetering in de cellulaire cholesterolexport (Figuur 4E,F). Blootstelling aan ox-LDL verhoogde bovendien de secretie van de pro-inflammatoire cytokinen TNF-α, IL-6 en IL-1β aanzienlijk. Behandeling met PF verminderde de concentraties van alle drie de cytokinen in het cultuursupernatant significant. Behandeling met HQT attenuateerde de door ox-LDL geïnduceerde cytokinesecretie op soortgelijke wijze (Figuur 4G). Collectief geven deze resultaten aan dat PF verschillende beschermende effecten reproduceert die zijn waargenomen bij het volledige HQT-preparaat, waaronder AMPK-activatie, verminderde lipideaccumulatie, versterkte cholesteroleflux en onderdrukking van inflammatoire responsen. Deze bevindingen ondersteunen de selectie van PF als een bioactief bestanddeel van HQT voor daaropvolgend mechanistisch onderzoek.
Verder werd een cellular thermal shift assay (CETSA) uitgevoerd om te beoordelen of PF de thermische stabiliteit van AMPK beïnvloedde. Naarmate de incubatietemperatuur steeg, namen de detecteerbare niveaus van AMPK en gefosforyleerd AMPK geleidelijk af in zowel de vehicle- als de PF-behandelde monsters. PF-behandeling zorgde echter voor een verhoogde retentie van AMPK en p-AMPK bij verschillende temperaturen in vergelijking met de overeenkomstige vehicle-behandelde monsters (Figuur 4H,I). Deze bevindingen suggereren dat PF de thermische stabiliteit van AMPK verhoogt en zijn consistent met een potentiële target engagement tussen PF en AMPK. Op basis van deze resultaten werd in opeenvolgende experimenten onderzocht of farmacologische of genetische inhibitie van AMPK de beschermende effecten van PF in met ox-LDL behandelde macrofagen verminderde.
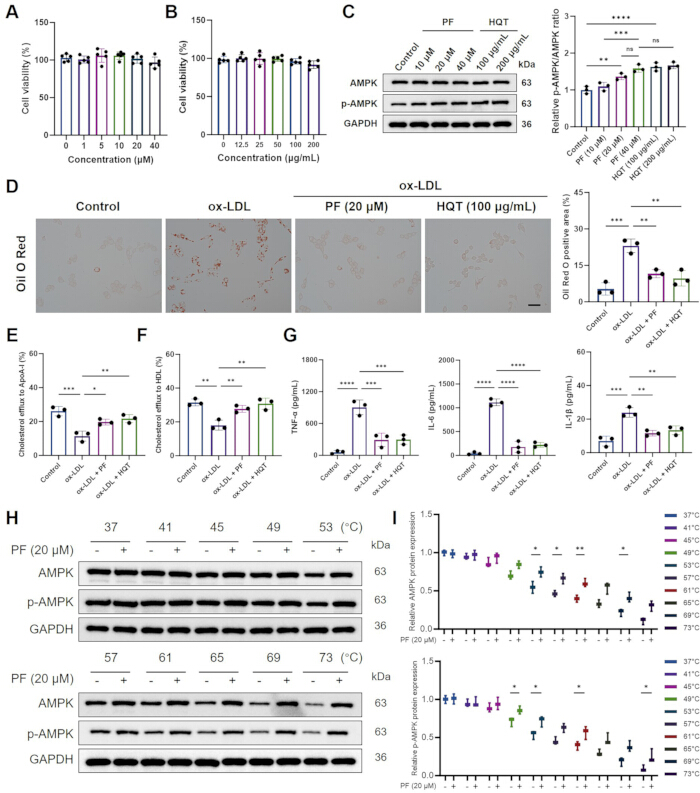
Figuur 4. Paeoniflorine en Huangqin Tang activeren AMPK en verlichten door geoxideerd low-density lipoprotein geïnduceerde macrofaagdysfunctie. (A) Levensvatbaarheid van RAW264.7-cellen na behandeling met de aangegeven concentraties paeoniflorine (PF; n = 5). (B) Levensvatbaarheid van cellen na behandeling met de aangegeven concentraties HQT-extract (n = 5). (C) Representatieve western blots van AMPK en gefosforyleerd AMPK en kwantificering van de p-AMPK/AMPK-ratio na behandeling met PF of HQT (n = 3). GAPDH werd gebruikt als loading control. (D) Representatieve Oil Red O-kleuringsbeelden en kwantificering van intracellulaire lipide-accumulatie (n = 3). Schaalbalk = 100 µm. (E) Apolipoproteïne A-I-gemedieerde cholesteroleflux (n = 3). (F) High-density lipoprotein-gemedieerde cholesteroleflux (n = 3). (G) TNF-α, IL-6 en IL-1β concentraties in cultuursupernatanten gemeten via ELISA (n = 3). (H) Representatieve cellular thermal shift assay-blots van AMPK en p-AMPK na incubatie bij de aangegeven temperaturen in afwezigheid of aanwezigheid van PF. GAPDH werd gebruikt als loading control. (I) Kwantificering van de thermische stabiliteit van AMPK en p-AMPK (n = 3). Gegevens worden gepresenteerd als het gemiddelde ± SD. Statistische significantie wordt aangegeven als *P < 0,05, **P < 0,01, ***P < 0,001 en ****P < 0,0001. Horizontale balken identificeren de geteste paarsgewijze vergelijkingen. In paneel C waren de aangegeven vergelijkingen Controle versus PF (20 µM), PF (10 µM) versus PF (40 µM), PF (20 µM) versus PF (40 µM), Controle versus HQT (100 µg/mL) en PF (40 µM) versus HQT (200 µg/mL). In panelen D–G waren de aangegeven vergelijkingen Controle versus ox-LDL, ox-LDL versus ox-LDL + PF en ox-LDL versus ox-LDL + HQT. In paneel I werden vehicle- en PF-behandelde monsters vergeleken bij elke temperatuur die door een horizontale balk wordt aangegeven. Klik hier om een grotere versie van deze figuur te bekijken.
PF vermindert lipideaccumulatie en de afgifte van inflammatoire cytokinen en herstelt het intracellulaire ATP in met ox-LDL behandelde RAW264.7-cellen
Oil Red O-kleuring toonde aan dat ox-LDL-behandeling leidde tot een duidelijke intracellulaire lipideaccumulatie en schuimcelvorming in RAW264.7-cellen, zoals blijkt uit de talrijke intens gekleurde lipidedruppels in vergelijking met de controlegroep (Figuur 5A,B). PF-behandeling verminderde zowel het aantal als het gekleurde oppervlak van de lipidedruppels significant ten opzichte van de ox-LDL-groep. In overeenstemming met deze verbetering in lipideaccumulatie remde PF ook de door ox-LDL geïnduceerde ontstekingsreactie. De spiegels van TNF-α, IL-6 en IL-1β in de kweeksupernatanten waren significant verhoogd na blootstelling aan ox-LDL, maar werden aanzienlijk verlaagd door PF-behandeling (Figuur 5C–E). Bovendien verlaagde ox-LDL de intracellulaire ATP-spiegels significant, terwijl PF het ATP-gehalte gedeeltelijk herstelde, wat duidt op een verbetering van de cellulaire energiestatus (Figuur 5F). Ox-LDL belemmerde ook de ApoA-I-gemedieerde en HDL-gemedieerde cholesterolefflux, terwijl PF beide vormen van cholesterolefflux significant verhoogde ten opzichte van de ox-LDL-groep (Figuur 5G,H). Gelijktijdige behandeling met de AMPK-remmer dorsomorfine verminderde elk van deze effecten van PF gedeeltelijk, wat resulteerde in een verhoogde lipideaccumulatie en hogere spiegels van pro-inflammatoire cytokinen, samen met een verlaagd ATP-gehalte en verminderde cholesterolefflux, vergeleken met behandeling met PF alleen (Figuur 5B–H). Gezamenlijk duiden deze bevindingen erop dat PF de door ox-LDL geïnduceerde verstoringen in de lipidehuishouding, ontstekingsreacties en cellulaire energiehomeostase in RAW264.7-cellen verlicht, waarbij AMPK-signalering mogelijk bijdraagt aan deze gecoördineerde beschermende effecten.
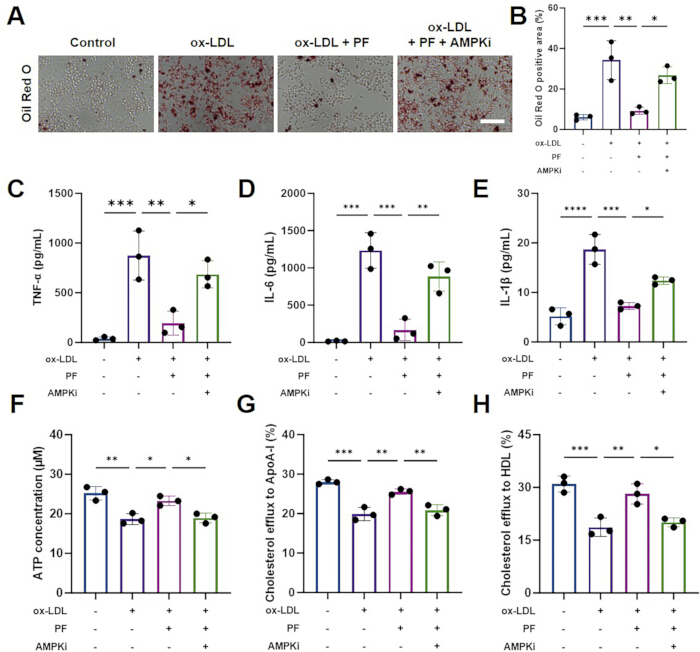
Figuur 5. AMPK-inhibitie vermindert de door paeoniflorine gemedieerde afname van ontsteking en lipideaccumulatie en de verbeteringen in ATP-gehalte en cholesteroleflux. (A) Representatieve Oil Red O-kleuringsbeelden van RAW264.7-cellen. Schaalbalk = 100 µm. (B) Kwantificering van het Oil Red O-positieve areaal (n = 3). (C–E) Respectievelijk de concentraties van TNF-α, IL-6 en IL-1β in cultuursupernatanten, gemeten via ELISA (n = 3). (F) Intracellulaire ATP-concentratie (n = 3). (G) Apolipoproteïne A-I-gemedieerde cholesteroleflux (n = 3). (H) High-density lipoprotein-gemedieerde cholesteroleflux (n = 3). AMPKi duidt de AMPK-remmer dorsomorfine aan. Gegevens worden weergegeven als het gemiddelde ± SD van drie onafhankelijke experimenten. Statistische significantie wordt aangegeven als *P < 0.05, **P < 0.01, ***P < 0.001 en ****P < 0.0001. Horizontale balken identificeren de geteste paarsgewijze vergelijkingen. In panelen B–H waren de aangegeven vergelijkingen Control versus ox-LDL, ox-LDL versus ox-LDL + PF, en ox-LDL + PF versus ox-LDL + PF + AMPKi. Klik hier om een grotere versie van deze figuur te bekijken.
PF vermindert ox-LDL-geïnduceerde mitochondriale dysfunctie, oxidatieve stress en apoptose
TUNEL-kleuring toonde aan dat ox-LDL de TUNEL-fluorescentie in RAW264.7-cellen aanzienlijk verhoogde, wat duidt op versterkte apoptose, terwijl PF-behandeling de door ox-LDL geïnduceerde TUNEL-fluorescentie significant verminderde. Gelijktijdige behandeling met de AMPK-remmer dorsomorfine keerde het anti-apoptotische effect van PF gedeeltelijk om (Figuur 6A,B). Consistent hiermee verhoogde ox-LDL de intracellulaire ROS-spiegels aanzienlijk, zoals aangegeven door versterkte DCFH-DA-fluorescentie, terwijl PF de ROS-accumulatie significant verminderde; dit antioxidant-effect werd gedeeltelijk omgekeerd door dorsomorfine (Figuur 6C,D). JC-1-kleuring toonde verder aan dat ox-LDL-behandeling de rode JC-1-aggregaatfluorescentie verlaagde en de groene JC-1-monomeerfluorescentie verhoogde, wat resulteerde in een significant verhoogde groen-rood fluorescentieverhouding, indicatief voor depolarisatie van het mitochondriale membraan. PF-behandeling verminderde de groen-rood fluorescentieverhouding aanzienlijk, terwijl gelijktijdige behandeling met dorsomorfine dit effect gedeeltelijk omkeerde (Figuur 6E,F). Collectief geven deze bevindingen aan dat PF de door ox-LDL geïnduceerde depolarisatie van het mitochondriale membraan, excessieve ROS-productie en apoptose in RAW264.7-cellen verlicht, waarbij AMPK-signalering mogelijk bijdraagt aan deze beschermende effecten.
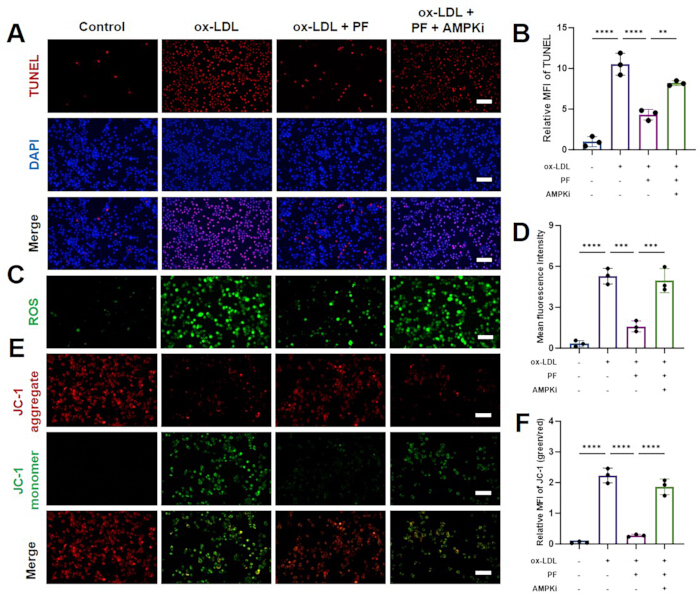
Figuur 6. AMPK-inhibitie vermindert de effecten van paeoniflorine op apoptose, oxidatieve stress en verlies van mitochondriaal membraanpotentiaal geïnduceerd door geoxideerd low-density lipoprotein. (A) TUNEL-assay voor apoptose in RAW264.7-cellen (schaalbalk = 100 µm) en (B) Overeenkomstige kwantitatieve analyse (n = 3). (C) ROS-kleuring van RAW264.7-cellen (schaalbalk = 100 μm) en (D) Kwantitatieve resultaten (n = 3). (E) JC-1-kleuring van RAW264.7-cellen (schaalbalk = 100 μm) en (F) Overeenkomstige kwantitatieve analyse (n = 3). Gegevens worden gepresenteerd als het gemiddelde ± SD van drie onafhankelijke experimenten. Statistische significantie wordt aangegeven als *P < 0.05, **P < 0.01, ***P < 0.001, en ****P < 0.0001. Horizontale balken identificeren de geteste paarsgewijze vergelijkingen. In panels B, D en F waren de aangegeven vergelijkingen Controle versus ox-LDL, ox-LDL versus ox-LDL + PF, en ox-LDL + PF versus ox-LDL + PF + AMPKi. Klik hier om een grotere versie van deze figuur te bekijken.
AMPK-remming vermindert PF-geassocieerde veranderingen in ABCA1 en apoptose-gerelateerde eiwitten
Western blot-analyse toonde aan dat de totale AMPK-eiwitovervloed relatief stabiel bleef tussen de behandelingsgroepen, terwijl ox-LDL de p-AMPK/AMPK-ratio significant verhoogde en de ABCA1-expressie verlaagde in vergelijking met de controlegroep. PF-behandeling verhoogde de p-AMPK/AMPK-ratio verder en herstelde de ABCA1-expressie ten opzichte van de ox-LDL-groep. Co-behandeling met de AMPK-remmer dorsomorfine dempte deze PF-geassocieerde veranderingen significant, wat resulteerde in een lagere p-AMPK/AMPK-ratio en een verminderde ABCA1-expressie dan waargenomen in de ox-LDL + PF-groep (Figuur 7A,B). Analyse van apoptose-gerelateerde eiwitten toonde aan dat ox-LDL de totale caspase-3-expressie significant verhoogde en de BCL-2/BAX-ratio verlaagde in vergelijking met de controlegroep. PF-behandeling verminderde de totale caspase-3-expressie significant en verhoogde de BCL-2/BAX-ratio ten opzichte van de ox-LDL-groep. Co-behandeling met dorsomorfine keerde deze PF-geassocieerde veranderingen om, wat resulteerde in een verhoogde totale caspase-3-expressie en een verlaagde BCL-2/BAX-ratio in vergelijking met de ox-LDL + PF-groep (Figuur 7C,D). Deze bevindingen geven aan dat AMPK-remming de effecten van PF op de ABCA1-expressie en apoptose-gerelateerde eiwitprofielen in ox-LDL-behandelde RAW264.7-cellen dempt.
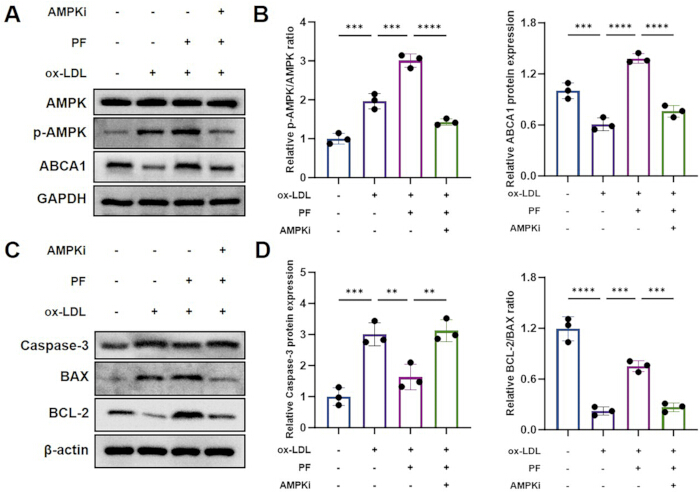
Figuur 7. AMPK-inhibitie vermindert paeoniflorine-geassocieerde veranderingen in AMPK-fosforylering, ABCA1-expressie en apoptose-gerelateerde eiwitten. (A) Representatieve western blots van AMPK, p-AMPK en ATP-binding cassette transporter A1 (ABCA1). GAPDH werd gebruikt als loading control. (B) Kwantificering van de p-AMPK/AMPK-ratio en de relatieve ABCA1-eiwitexpressie (n = 3). (C) Representatieve western blots van totaal caspase-3, BAX en BCL-2. β-Actine werd gebruikt als loading control. (D) Kwantificering van de relatieve expressie van totaal caspase-3 en de BCL-2/BAX-ratio (n = 3). AMPKi duidt de AMPK-remmer dorsomorfine aan. Gegevens worden gepresenteerd als het gemiddelde ± SD van drie onafhankelijke experimenten. Statistische significantie wordt aangegeven als *P < 0.05, **P < 0.01, ***P < 0.001 en ****P < 0.0001. Horizontale balken identificeren de geteste paarsgewijze vergelijkingen. Voor beide kwantitatieve resultaten in panelen B en D waren de aangegeven vergelijkingen Control versus ox-LDL, ox-LDL versus ox-LDL + PF en ox-LDL + PF versus ox-LDL + PF + AMPKi. Klik hier om een grotere versie van deze figuur te bekijken.
AMPK-silencing vermindert PF-geassocieerde toenames in nucleaire LXRα-abundantie en remming van NF-κB-signalering in ox-LDL-behandelde RAW264.7-cellen
Om de betrokkenheid van AMPK bij de effecten van PF verder te bepalen, werd de expressie van AMPK onderdrukt met behulp van siRNA. Zowel de AMPK mRNA- als eiwitniveaus waren significant verlaagd in si-AMPK-getransfecteerde cellen vergeleken met de si-NC-groep, wat een effectieve knockdown bevestigt (Figuur 8A,B). PF verhoogde de nucleaire LXRα-expressie en verlaagde de nucleaire p-p65/p65-ratio in ox-LDL-behandelde cellen, terwijl AMPK-knockdown deze effecten significant afzwakte (Figuur 8C,D). In overeenstemming hiermee verhoogde ox-LDL de p-p65/p65-ratio van de gehele cel aanzienlijk, wat werd onderdrukt door PF maar gedeeltelijk werd hersteld na AMPK-knockdown (Figuur 8E). PF keerde ook de door ox-LDL geïnduceerde afname van de IκB-α-expressie en toename van de p-IκB-α-expressie om, terwijl deze effecten werden afgezwakt door si-AMPK (Figuur 8F). Gezamenlijk suggereren deze resultaten dat AMPK bijdraagt aan de PF-gemedieerde toename van de nucleaire LXRα-hoeveelheid en de inhibitie van NF-κB-signalering.
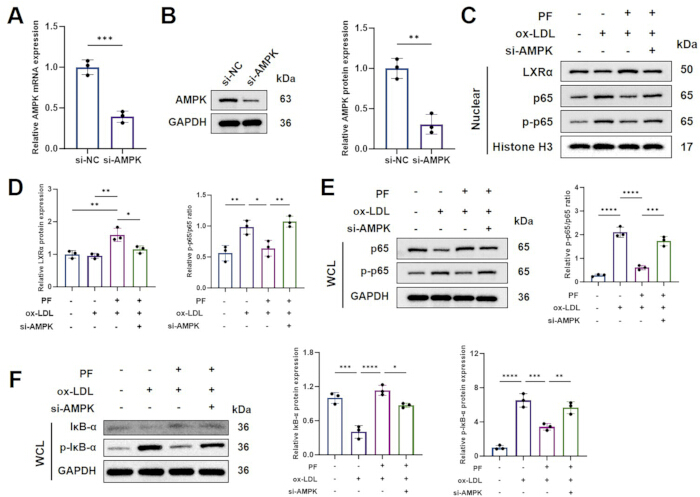
Figuur 8. AMPK-silencing vermindert de door paeoniflorine gemedieerde toenames in nucleaire LXRα-abundantie en de inhibitie van NF-κB-signalering. (A) Relatieve AMPK mRNA-expressie na transfectie met negatieve-controle siRNA of AMPK-targeterende siRNA (n = 3). (B) Representatieve western blot en kwantificering van AMPK-proteinexpressie na siRNA-transfectie (n = 3). GAPDH werd gebruikt als loading control. (C) Representatieve western blots van nucleaire LXRα, p65 en p-p65. Histon H3 werd gebruikt als nucleaire loading control. (D) Kwantificering van de relatieve nucleaire LXRα-expressie en de nucleaire p-p65/p65-ratio (n = 3). (E) Representatieve western blots van whole-cell p65 en p-p65 en kwantificering van de p-p65/p65-ratio (n = 3). GAPDH werd gebruikt als loading control. (F) Representatieve western blots van whole-cell IκB-α en p-IκB-α en de corresponderende kwantitatieve analyses (n = 3). GAPDH werd gebruikt als loading control. Gegevens worden gepresenteerd als het gemiddelde ± SD van drie onafhankelijke experimenten. Statistische significantie wordt aangegeven als *P < 0.05, **P < 0.01, *** P < 0.001 en **** P < 0.0001. Horizontale balken identificeren de geteste paarsgewijze vergelijkingen. In panelen A en B werd si-NC vergeleken met si-AMPK. Voor de nucleaire LXRα-expressie in paneel D waren de aangegeven vergelijkingen Control versus ox-LDL + PF, ox-LDL versus ox-LDL + PF, en ox-LDL + PF versus ox-LDL + PF + si-AMPK. Voor de nucleaire p-p65/p65-ratio in paneel D en de kwantitatieve analyses in panelen E en F waren de aangegeven vergelijkingen Control versus ox-LDL, ox-LDL versus ox-LDL + PF, en ox-LDL + PF versus ox-LDL + PF + si-AMPK. Klik hier om een grotere versie van deze figuur te bekijken.
AMPK-silencing vermindert PF-gemedieerde cholesterolefflux en modulatie van het macrofaagfenotype
Om vast te stellen of farmacologische inhibitie van NF-κB functionele veranderingen teweegbracht die vergelijkbaar waren met die geassocieerd met PF, werden de ABCA1-expressie, cholesterol-efflux, lipideaccumulatie en macrofaag-fenotypische markers geëvalueerd. PF herstelde de ABCA1-expressie en versterkte de ApoA-I-gemedieerde en HDL-gemedieerde cholesterol-efflux in met ox-LDL behandelde cellen, terwijl AMPK-silencing deze effecten significant attenuationeerde (Figuur 9A–C). In overeenstemming hiermee verminderde PF de intracellulaire lipideaccumulatie, terwijl si-AMPK dit effect gedeeltelijk terugdraaide (Figuur 9D,E). Behandeling met BAY 11-7082 produceerde veranderingen die vergelijkbaar waren met die geïnduceerd door PF, waaronder een verhoogde ABCA1-expressie en cholesterol-efflux en een verminderde intracellulaire lipideaccumulatie (Figuur 9A–E). Flowcytometrische analyse werd uitgevoerd met behulp van de gating-strategie getoond in Figuur 9F. Ox-LDL verhoogde de proportie CD86-positieve macrofagen aanzienlijk, terwijl PF deze populatie verminderde; dit effect werd attenuationeerd door AMPK-silencing (Figuur 9G,H). In contrast verhoogde PF de proportie CD206-positieve macrofagen, wat gedeeltelijk werd teruggedraaid door si-AMPK (Figuur 9I,J). BAY 11-7082 verminderde op soortgelijke wijze de proportie CD86-positieve macrofagen en verhoogde de proportie CD206-positieve macrofagen (Figuur 9G–J). Deze bevindingen geven aan dat AMPK bijdraagt aan de effecten van PF op de cholesterolhomeostase en de fenotypische modulatie van macrofagen, potentieel via regulatie van NF-κB-signalering.
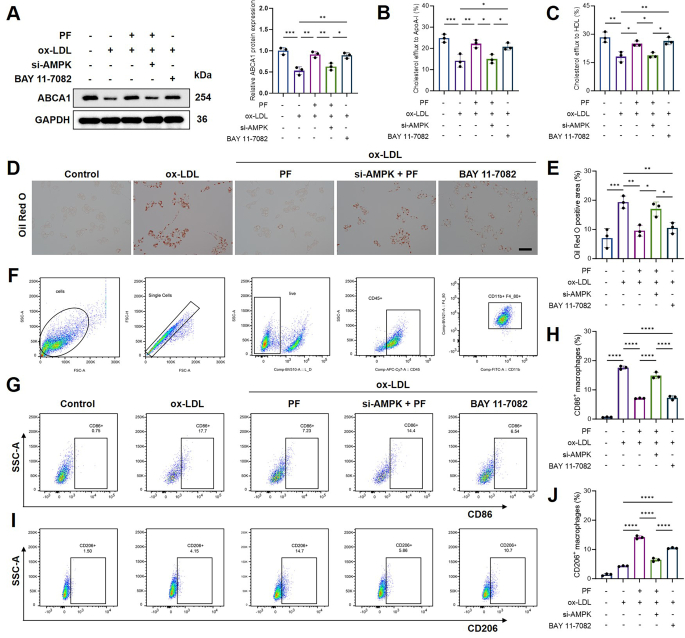
Figuur 9. AMPK-silencing en NF-κB-remming moduleren de paeoniflorine-geassocieerde cholesteroleflux, lipideaccumulatie en het macrofaagfenotype. (A) Representatieve western blot en kwantificatie van de ABCA1-expressie (n = 3). GAPDH werd gebruikt als loading control. (B) Apolipoproteïne A-I-gemedieerde cholesteroleflux (n = 3). (C) High-density lipoprotein-gemedieerde cholesteroleflux (n = 3). (D) Representatieve afbeeldingen van Oil Red O-kleuring. Schaalbalk = 100 µm. (E) Kwantificatie van het Oil Red O-positieve oppervlak (n = 3). (F) Sequentiële flowcytometrie-gatingstrategie gebruikt om cellen, singlets, levensvatbare CD45-positieve cellen en CD11b-positieve/F4/80-positieve macrofagen te identificeren. (G) Representatieve flowcytometrie-plots van CD86-positieve macrofagen. (H) Kwantificatie van CD86-positieve macrofagen (n = 3). (I) Representatieve flowcytometrie-plots van CD206-positieve macrofagen. (J) Kwantificatie van CD206-positieve macrofagen (n = 3). BAY 11-7082 werd gebruikt als NF-κB-remmer. Gegevens worden gepresenteerd als het gemiddelde ± SD van drie onafhankelijke experimenten. Statistische significantie wordt aangegeven als *P < 0.05, **P < 0.01, ***P < 0.001, en ****P < 0.0001. Horizontale balken identificeren de geteste paarsgewijze vergelijkingen. In panelen A–C, E en H waren de aangegeven vergelijkingen Control versus ox-LDL, ox-LDL versus ox-LDL + PF, ox-LDL + PF versus ox-LDL + PF + si-AMPK, ox-LDL + PF + si-AMPK versus ox-LDL + BAY 11-7082, en ox-LDL versus ox-LDL + BAY 11-7082. In paneel J waren de aangegeven vergelijkingen ox-LDL versus ox-LDL + PF, ox-LDL + PF versus ox-LDL + PF + si-AMPK, ox-LDL + PF + si-AMPK versus ox-LDL + BAY 11-7082, en ox-LDL versus ox-LDL + BAY 11-7082. Klik hier om een grotere versie van deze figuur te bekijken.
Beschikbaarheid van gegevens:
De publiek toegankelijke microarray-dataset die in deze studie is geanalyseerd, is beschikbaar via de National Center for Biotechnology Information Gene Expression Omnibus (GEO) onder accessienummer GSE100927. Alle ruwe en verwerkte gegevens die in deze studie zijn gegenereerd, worden bij dit artikel gevoegd als aanvullende bestanden en zullen na publicatie zonder beperkingen publiek toegankelijk zijn. Aanvullende gegevens 1 bevat de onderliggende numerieke brondata voor Figuren 4–9 en de bijbehorende statistische analyses. Aanvullende gegevens 2 bevat de originele, niet-bijgesneden western blot- en CETSA-afbeeldingen. Aanvullende gegevens 3 bevat de originele microscopiebeelden met volledige resolutie die zijn gebruikt voor kwantitatieve analyse. Aanvullende gegevens 4 bevat de ruwe flowcytometrie FCS-bestanden, controlebestanden, compensatie-informatie, gating-gegevens en de FlowJo-werkruimte. Aanvullende gegevens 5 bevat de volledige R-scripts die zijn gebruikt voor de netwerkfarmacologische en transcriptomische analyses, inclusief datapreprocessing, differentiële expressieanalyse, visualisatie, target-integratie en verrijkingsanalyse.
Aanvullende gegevens 1. Bronnumerieke gegevens en statistische analyses. Excel-werkmap met de bronnumerieke gegevens en de bijbehorende statistische analyses ten grondslag aan Figuur 4–9, georganiseerd per figuur in afzonderlijke werkbladen. De werkmap bevat de kwantitatieve gegevens die zijn gebruikt voor het genereren van grafieken en statistische vergelijkingen.Klik hier om dit bestand te downloaden.
Aanvullende gegevens 2. Originele onbijgesneden western blot- en CETSA-afbeeldingen. PDF met de originele onbijgesneden afbeeldingen van alle western blot- en CETSA-experimenten die in het manuscript worden gepresenteerd, georganiseerd per figuur en paneel om de brondata te documenteren die zijn gebruikt voor de beeldbewerking en kwantificering.Klik hier om dit bestand te downloaden.
Aanvullende gegevens 3. Originele microscopiebeelden met volledige resolutie. PDF met de originele microscopiebeelden met volledige resolutie die zijn gebruikt voor kwalitatieve presentatie en kwantitatieve analyses, inclusief representatieve beelden die corresponderen met de figuren in het manuscript.Klik hier om dit bestand te downloaden.
Aanvullende Gegevens 4. Ruwe flowcytometriegegevens. Ruwe FCS-bestanden, controlebestanden, compensatie-informatie, gating-records en de FlowJo-werkruimte die is gebruikt voor de flowcytometrieanalyses. De volledige dataset is beschikbaar via Microsoft OneDrive: https://1drv.ms/f/c/8d1d81159583ae0f/IgA367Hi90R5CfjDR5uwoGARiUYsefUFv0_OKSUWT5jGY?e=caEpxo. Een PDF-samenvatting van de flowcytometrieanalyses is tevens als reserve beschikbaar.Klik hier om dit bestand te downloaden.
Aanvullende gegevens 5. R-scripts voor netwerkfarmacologie en transcriptomische analyses. Twee R-scriptbestanden die de volledige computationele workflow bevatten die is gebruikt voor de netwerkfarmacologische en transcriptomische analyses. De scripts omvatten het laden en installeren van pakketten, datapreprocessing, differentieel expressie-analyse, targetintegratie, functionele verrijkingsanalyses, datavisualisatie en het genereren van de gerapporteerde analytische resultaten.Klik hier om dit bestand te downloaden.
Discussie
De vorming van macrofaag-schuimcellen wordt niet alleen gedreven door een overmatige opname van gemodificeerde lipoproteïnen, maar ook door een verminderde cholesterolexport en aanhoudende inflammatoire activatie. De huidige studie verbindt deze processen door AMPK-gerelateerde signalering te identificeren als een potentieel mechanisme waardoor PF werd geassocieerd met gelijktijdige veranderingen in de lipidestofwisseling, inflammatoire reacties en cellulaire stress, waarvan meerdere werden afgezwakt door AMPK-inhibitie of silencing. De grotendeels consistente effecten van PF en HQT geven verder aan dat PF een biologisch relevant bestanddeel van de formule is. Desalniettemin, aangezien HQT meerdere actieve verbindingen bevat die additief of synergistisch kunnen werken, ondersteunen deze bevindingen PF als een representatief bestanddeel, in plaats van het vast te stellen als de belangrijkste actieve stof van HQT.
AMPK functioneert als een metabool controlepunt dat de inflammatoire activatie van macrofagen kan beperken. Eerdere studies hebben aangetoond dat AMPK-activatie de degradatie van IκB beperkt, de productie van inflammatoire mediatoren vermindert en een minder inflammatoir macrofaagfenotype bevordert. Er is ook gerapporteerd dat AMPK-activatie de opname van ox-LDL onderdrukt via regulatie van het PP2A/NF-κB/LOX-1-pad26,27. De huidige farmacologische en genetische bevindingen breiden deze observaties uit door aan te tonen dat AMPK vereist was voor verschillende PF-gerelateerde effecten op cholesterolexport en inflammatoire signalering. AMPK medieert dus mogelijk niet simpelweg een geïsoleerde respons op PF, maar kan de metabole en immunomodulerende acties ervan in macrofagen integreren. De relatie tussen AMPK, LXRα en ABCA1 biedt een plausibele verklaring voor de waargenomen verbetering in cholesteroleflux. LXRα is een centrale transcriptionele regulator van ABCA1, en activatie van het LXRα–ABCA1-pad bevordert de verwijdering van overtollig cholesterol uit macrofagen28. Studies in humane macrofagen hebben verder aangetoond dat AMPK LXRα en de stroomafwaartse cholesteroltransporters ervan kan reguleren, terwijl LXR-gestimuleerde cholesteroleflux sterk afhankelijk is van ABCA129,30. In de huidige studie verzwakte AMPK-silencing de effecten van PF op de abundantie van nucleair LXRα, de ABCA1-expressie en de ApoA-I-gemedieerde en HDL-gemedieerde cholesteroleflux. Deze observaties zijn consistent met een model waarin LXRα/ABCA1-gerelateerde regulatie stroomafwaarts van AMPK plaatsvindt. Omdat ABCA1 echter niet direct werd gesilenced, ondersteunen de gegevens een causale AMPK–LXRα–ABCA1-sequentie, maar bewijzen deze deze niet volledig.
De bevindingen suggereren daarnaast een reciproque regulatie tussen cholesterolhomeostase en inflammatoire signalering. Ontsteking kan de ABCA1-expressie en cholesterol-efflux onderdrukken, waardoor lipideretentie in macrofagen wordt gefaciliteerd. Omgekeerd is aangetoond dat inhibitie van NF-κB de ABCA1-expressie en cholesterolexport in inflammatoire macrofagen herstelt31. De soortgelijke effecten die PF en BAY 11-7082 in de huidige studie teweegbrachten, ondersteunen deze crosstalk: onderdrukking van NF-κB-signalering ging gepaard met een verhoogde ABCA1-expressie, een verbeterde cholesterol-efflux en een verminderde lipidaccumulatie. AMPK-silencing verzwakte zowel de metabole als de inflammatoire effecten van PF, wat suggereert dat AMPK deze twee onderling verbonden processen coördineert in plaats van ze onafhankelijk te reguleren. Eerder werk heeft aangetoond dat PF pro-inflammatoire macrofaagactivatie kan onderdrukken door NF-κB-signalering te inhiberen. Er is ook gerapporteerd dat behandelingen met PF de ABCA1/ABCG1-geassocieerde cholesterolexport verbeteren en schuimcelvorming verminderen32,33. De huidige studie biedt aanvullende mechanistische context door deze eerder beschreven lipid-regulerende en anti-inflammatoire eigenschappen te koppelen aan AMPK. Bovendien onderscheidt de vergelijking met het volledige HQT-preparaat het huidige werk van studies waarin PF geïsoleerd is onderzocht, en suggereert het dat PF en HQT gedeeltelijk overlappende effecten produceerden in de geselecteerde macrofaag-assays.
AMPK-geassocieerde mechanismen kunnen bijdragen aan de effecten van PF op oxidatieve stress en mitochondriale integriteit. Door Ox-LDL geïnduceerde lipidebelading veroorzaakt aanzienlijke energetische en oxidatieve stress bij macrofagen, wat mitochondriale depolarisatie en apoptose kan bevorderen. Het gelijktijdige herstel van ATP-niveaus, het mitochondriale membraanpotentiaal en de antioxidantcapaciteit dat werd waargenomen na PF-behandeling, is daarom consistent met gecoördineerde metabole bescherming in plaats van verschillende ongerelateerde effecten. Een eerdere studie naar macrofagen stelde op soortgelijke wijze vast dat PF de ophoping van ROS verminderde, het mitochondriale membraanpotentiaal behield en het inflammatoire fenotype veranderde via regulatie van de mitochondriale kwaliteitscontrole34. Deze bevindingen suggereren dat het behoud van de mitochondriale functie kan bijdragen aan de anti-inflammatoire en anti-apoptotische werking van PF, hoewel de specifieke downstream-effectoren van AMPK nog moeten worden geïdentificeerd. De CETSA-bevindingen leveren een aanvullend bewijs dat PF verbindt met AMPK. CETSA is ontwikkeld om de intracellulaire interactie tussen geneesmiddel en target te evalueren door liganden-geassocieerde veranderingen in de thermische stabiliteit van eiwitten te detecteren35. De op lysaten gebaseerde CETSA-resultaten zijn compatibel met PF-geassocieerde stabilisatie van AMPK of een AMPK-bevattend eiwitcomplex in cellysaten. Thermische stabilisatie alleen kan echter geen onderscheid maken tussen directe ligandbinding en indirecte stabilisatie als gevolg van veranderde fosforylering, eiwitinteracties of de cellulaire context. Directe PF–AMPK-binding zou bevestiging vereisen met behulp van gezuiverde eiwitten of andere biofysische benaderingen.
PF verminderde ook de proportie CD86-positieve cellen en verhoogde de proportie CD206-positieve cellen, en deze veranderingen werden afgezwakt door AMPK-silencing. Deze bevindingen zijn consistent met eerder bewijs dat PF het inflammatoire fenotype van macrofagen kan veranderen32,34. Niettemin bestaat macrofaagactivatie langs een multidimensionaal spectrum in plaats van als twee vaste M1- en M2-toestanden36. CD86 en CD206 moeten daarom worden geïnterpreteerd als fenotypische markers die respectievelijk geassocieerd zijn met inflammatoire en herstelprogramma's, in plaats van als definitief bewijs van een volledige M1-naar-M2 conversie. Aanvullende transcriptionele, secretoire en functionele markers zouden nodig zijn om het macrofaagfenotype uitgebreider te karakteriseren. Verschillende beperkingen moeten worden erkend. Ten eerste waren de experimenten beperkt tot RAW264.7-cellen, en de bevindingen vereisen validatie in primaire macrofagen of menselijke macrofagen en in vivo AS-modellen. Ten tweede, hoewel de gekozen PF-concentratie niet-cytotoxisch was en de AMPK-fosforylering verhoogde, werd er geen volledige concentratie-responsrelatie voor de belangrijkste functionele uitkomsten vastgesteld. Ten derde werden er geen ABCA1-specifieke loss-of-function en rescue-experimenten uitgevoerd, en het voorgestelde AMPK–LXRα–ABCA1-pad moet daarom worden beschouwd als een ondersteund mechanistisch model in plaats van een volledig vastgestelde lineaire cascade. Ten vierde werden PF en HQT vergeleken met behulp van verschillende concentratie-eenheden, en het PF-gehalte en de fytochemische consistentie van de HQT-preparaat werden niet kwantitatief geëvalueerd. Ten slotte duiden de CETSA-resultaten op potentiële intracellulaire target-engagement, maar tonen ze onafhankelijk geen directe moleculaire binding aan.
Concluderend suggereren de huidige bevindingen dat PF de door ox-LDL geïnduceerde macrofaagdysfunctie verlicht door de coördinatie van cholesterolexport, inflammatoire signalering, energiemetabolisme en mitochondriale homeostase. Farmacologische inhibitie en siRNA-gemedieerde AMPK-silencing verminderden verschillende PF-gemedieerde beschermende effecten en gingen gepaard met veranderingen in de abundantie van nucleair LXRα, ABCA1-expressie, cholesterolefflux en NF-κB-signalering. PF vertoonde macrofaagbeschermende effecten die onder de geteste condities overlapten met verschillende effecten die werden waargenomen na HQT-behandeling. De bijdrage van PF aan de totale activiteit van HQT blijft onduidelijk.
Openbaarmakingen
Belangenverstrengeling:
De auteurs verklaren dat er geen concurrerende belangen zijn.
Dankbetuigingen
Geen.
Auteursbijdragen:
Yunjie Zeng: Conceptualisatie, Methodologie, Onderzoek, Formele analyse, Gegevensbeheer, Visualisatie en Schrijven – originele concept
Huaying Wang: Methodologie, Onderzoek, Formele analyse, Validatie, Gegevensbeheer, Visualisatie en Schrijven – originele conceptversie
Dong Liu: Methodologie, Onderzoek en Validatie.
Yunlu Jiang: Onderzoek, gegevensbeheer en formele analyse.
Pengcheng Ren: Onderzoek, formele analyse en visualisatie.
Wenxin Song: Resources, Validatie en Schrijven – beoordeling & bewerken.
Guopeng Huang: Conceptualisatie, Methodologie, Toezicht, Projectleiding, Financiering en Schrijven – beoordeling & bewerken.
Xiaojiao He: Conceptualisatie, middelen, begeleiding, projectleiding, financiering en schrijfwerk – beoordeling & bewerken.
Yunjie Zeng en Huaying Wang droegen gelijkelijk bij aan dit werk en delen de eerste auteursschap. Guopeng Huang en Xiaojiao He zijn co-correspondent-auteurs. Alle auteurs hebben het definitieve manuscript beoordeeld en goedgekeurd.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Chemiluminescentiesysteem | Thermo Fisher Scientific | iBright Imaging System | |
| Flowcytometer | BD Biosciences | FACSCanto II | |
| Inverteerde fluorescentiemicroscoop | Olympus | IX73 | |
| Microplaatlezer | PerkinElmer | VICTOR X3 | |
| Real-time PCR-systeem | Bio-Rad | CFX Opus 96 | |
| Spectrofotometer | Thermo Fisher Scientific | NanoDrop 8000 |
Referenties
- Zysman M et al. Risk of cardiovascular events according to the severity of an exacerbation of chronic obstructive pulmonary disease. Eur J Prev Cardiol. 2025;32(15):1436-1444. doi:10.1093/eurjpc/zwaf086.
- Zvintzou E et al. Context-dependent effects of apolipoprotein A2 on lipid metabolism and atherogenesis. FASEB J. 2026;40(12):e72032. doi:10.1096/fj.202600765R.
- Zuriaga MA et al. Colchicine prevents accelerated atherosclerosis in TET2-mutant clonal haematopoiesis. Eur Heart J. 2024;45(43):4601-4615. doi:10.1093/eurheartj/ehae546.
- Zhang Y et al. Effects and mechanisms of Zhizi Chuanxiong herb pair against atherosclerosis: an integration of network pharmacology, molecular docking, and experimental validation. Chin Med. 2024;19(1):8. doi:10.1186/s13020-023-00874-x.
- Zysset D et al. TREM-1 links dyslipidemia to inflammation and lipid deposition in atherosclerosis. Nat Commun. 2016;7:13151. doi:10.1038/ncomms13151.
- Zou Z et al. Recent advances in nanozymes for the treatment of atherosclerosis. Int J Nanomedicine. 2025;20:9447-9472. doi:10.2147/IJN.S540010.
- Zoubdane N et al. High tyrosol and hydroxytyrosol intake reduces arterial inflammation and atherosclerotic lesion microcalcification in healthy older populations. Antioxidants (Basel). 2024;13(1):130. doi:10.3390/antiox13010130.
- Zhong T et al. Adaptation of endothelial cells to shear stress under atheroprone conditions by modulating internalization of vascular endothelial cadherin and vinculin. Ann Transl Med. 2020;8(21):1423. doi:10.21037/atm-20-3426.
- Zhuo S et al. Inflammatory corpuscle AIM2 facilitates macrophage foam cell formation by inhibiting cholesterol efflux protein ABCA1. Sci Rep. 2024;14(1):10782. doi:10.1038/s41598-024-61495-4.
- Zheng H et al. Lp-PLA2 silencing protects against ox-LDL-induced oxidative stress and cell apoptosis via Akt/mTOR signaling pathway in human THP-1 macrophages. Biochem Biophys Res Commun. 2016;477(4):1017-1023. doi:10.1016/j.bbrc.2016.07.022.
- Zhou Y et al. Asperlin inhibits LPS-evoked foam cell formation and prevents atherosclerosis in ApoE(-/-) mice. Mar Drugs. 2017;15(11):358. doi:10.3390/md15110358.
- Zhong Y, Liu C, Feng J, Li JF, Fan ZC. Curcumin affects ox-LDL-induced IL-6, TNF-α, MCP-1 secretion and cholesterol efflux in THP-1 cells by suppressing the TLR4/NF-κB/miR33a signaling pathway. Exp Ther Med. 2020;20(3):1856-1870. doi:10.3892/etm.2020.8915.
- Zhu C et al. TRIM64 promotes ox-LDL-induced foam cell formation, pyroptosis, and inflammation in THP-1-derived macrophages by activating a feedback loop with NF-κB via IκBα ubiquitination. Cell Biol Toxicol. 2023;39(3):607-620. doi:10.1007/s10565-022-09768-4.
- Zhang G et al. OxLDL/β2GPI/anti-β2GPI Ab complex induces inflammatory activation via the TLR4/NF-κB pathway in HUVECs. Mol Med Rep. 2021;23(2):148. doi:10.3892/mmr.2020.11787.
- Zu YX et al. Jiang Gui Fang activated interscapular brown adipose tissue and induced epididymal white adipose tissue browning through the PPARγ/SIRT1-PGC1α pathway. J Ethnopharmacol. 2020;248:112271. doi:10.1016/j.jep.2019.112271.
- Zu X et al. Antidepressant-like effect of Bacopaside I in mice exposed to chronic unpredictable mild stress by modulating the hypothalamic-pituitary-adrenal axis function and activating BDNF signaling pathway. Neurochem Res. 2017;42(11):3233-3244. doi:10.1007/s11064-017-2360-3.
- Zong K et al. Explorating the mechanism of Huangqin Tang against skin lipid accumulation through network pharmacology and experimental validation. J Ethnopharmacol. 2023;313:116581. doi:10.1016/j.jep.2023.116581.
- Zou Y et al. Huangqin Tang ameliorates dextran sodium sulphate-induced colitis by regulating intestinal epithelial cell homeostasis, inflammation and immune response. Sci Rep. 2016;6:39299. doi:10.1038/srep39299.
- Zou Y et al. Huangqin Tang ameliorates TNBS-induced colitis by regulating effector and regulatory CD4(+) T cells. Biomed Res Int. 2015;2015:102021. doi:10.1155/2015/102021.
- Wang D et al. Huangqin tang alleviates colitis-associated colorectal cancer via amino acid homeostasis and PI3K/AKT/mTOR pathway modulation. J Ethnopharmacol. 2024;334:118597. doi:10.1016/j.jep.2024.118597.
- Zhu X, Zhou Y, Cai W, Sun H, Qiu L. Salusin-β mediates high glucose-induced endothelial injury via disruption of AMPK signaling pathway. Biochem Biophys Res Commun. 2017;491(2):515-521. doi:10.1016/j.bbrc.2017.06.126.
- Zhu J, Chen H, Guo J, Zha C, Lu D. Sodium tanshinone IIA sulfonate inhibits vascular endothelial cell pyroptosis via the AMPK signaling pathway in atherosclerosis. J Inflamm Res. 2022;15:6293-6306. doi:10.2147/JIR.S386470.
- Kim J et al. Inhibition of Toll-like receptors alters macrophage cholesterol efflux and foam cell formation. Int J Mol Sci. 2024;25(12):6808. doi:10.3390/ijms25126808.
- Zuo J, Guo S, Qin X. Bisdemethoxycurcumin suppresses the progression of atherosclerosis and VSMC-derived foam cell formation by promoting lipophagy. Naunyn Schmiedebergs Arch Pharmacol. 2023;396(12):3659-3670. doi:10.1007/s00210-023-02558-7.
- Zong P et al. TRPM2 deficiency in mice protects against atherosclerosis by inhibiting TRPM2-CD36 inflammatory axis in macrophages. Nat Cardiovasc Res. 2022;1(4):344-360. doi:10.1038/s44161-022-00027-7.
- Sag D, Carling D, Stout RD, Suttles J. Adenosine 5'-monophosphate-activated protein kinase promotes macrophage polarization to an anti-inflammatory functional phenotype. J Immunol. 2008;181(12):8633-8641. doi:10.4049/jimmunol.181.12.8633.
- Chen B, Li J, Zhu H. AMP-activated protein kinase attenuates oxLDL uptake in macrophages through PP2A/NF-κB/LOX-1 pathway. Vascul Pharmacol. 2016;85:1-10. doi:10.1016/j.vph.2015.08.012.
- Chawla A et al. A PPARγ-LXR-ABCA1 pathway in macrophages is involved in cholesterol efflux and atherogenesis. Mol Cell. 2001;7(1):161-171. doi:10.1016/S1097-2765(01)00164-2.
- Saenz J et al. Grapefruit flavonoid naringenin regulates the expression of LXRα in THP-1 macrophages by modulating AMP-activated protein kinase. Mol Pharm. 2018;15(5):1735-1745. doi:10.1021/acs.molpharmaceut.7b00797.
- Larrede S et al. Stimulation of cholesterol efflux by LXR agonists in cholesterol-loaded human macrophages is ABCA1-dependent but ABCG1-independent. Arterioscler Thromb Vasc Biol. 2009;29(11):1930-1936. doi:10.1161/ATVBAHA.109.194548.
- Zhao GJ et al. Antagonism of betulinic acid on LPS-mediated inhibition of ABCA1 and cholesterol efflux through inhibiting nuclear factor-kappaB signaling pathway and miR-33 expression. PLoS One. 2013;8(9):e74782. doi:10.1371/journal.pone.0074782.
- Zhai T et al. Unique immunomodulatory effect of paeoniflorin on type I and II macrophages activities. J Pharmacol Sci. 2016;130(3):143-150. doi:10.1016/j.jphs.2015.12.007.
- Mei J et al. Tetramethylpyrazine and Paeoniflorin Synergistically Attenuate Cholesterol Efflux in Macrophage Cells via Enhancing ABCA1 and ABCG1 Expression. Evid Based Complement Alternat Med. 2022;2022:4304790. doi:10.1155/2022/4304790.
- Cao Y et al. Paeoniflorin suppresses kidney inflammation by regulating macrophage polarization via KLF4-mediated mitophagy. Phytomedicine. 2023;116:154901. doi:10.1016/j.phymed.2023.154901.
- Martinez Molina D et al. Monitoring drug target engagement in cells and tissues using the cellular thermal shift assay. Science. 2013;341(6141):84-87. doi:10.1126/science.1233606.
- Xue J et al. Transcriptome-based network analysis reveals a spectrum model of human macrophage activation. Immunity. 2014;40(2):274-288. doi:10.1016/j.immuni.2014.01.006.