Infectie met de niervormige nematode vermindert de katoenopbrengst en de vezelkwaliteit aanzienlijk. Lignine versterkt de celwanden van planten en draagt bij aan structurele afweermechanismen tegen plagen, maar de rol ervan bij resistentie tegen de niervormige nematode in katoen is nog niet onderzocht. Deze studie beschrijft een histochemische workflow voor het visualiseren van lignineafzettingen in de wortels van resistente en gevoelige genotypen van de niervormige nematode in katoen (Gossypium arboreum) met behulp van phloroglucinolkleuring.
Onderzoeksartikel
Histochemische analyse van lignineverschillen tussen niervormige nematode-resistente en gevoelige katoengenotypes
In dit artikel
Samenvatting
Samenvatting
Nier-nematoden (Rotylenchulus reniformis) vormen een belangrijke belemmering voor de katoenproductie, met name in het zuiden van de Verenigde Staten. De nier-nematode is de op één na belangrijkste plaag onder meer dan 400 nematodensoorten. Deze nematoden vormen een bedreiging voor de wereldwijde voedselzekerheid. Toenemende zorgen over het milieu en de menselijke gezondheid, evenals de kosten van nematiciden, hebben de belangstelling voor resistent katoenkiemplasm vergroot. De celwand van de plant, en met name lignine, is een kritisch biopolymeer dat betrokken is bij resistentie tegen biotische stress. Omdat nematoden wortelweefsels infecteren, kunnen celwandcomponenten zoals lignine bijdragen aan de afweer; barrières gemedieerd door lignine in katoenwortels zijn echter nog niet goed gekarakteriseerd. In deze studie werd een gestandaardiseerd histochemisch kleuringsprotocol met phloroglucinol-HCl gebruikt om verschillen in lignineafzetting te visualiseren in resistente (A2-514, A2-995) en gevoelige katoengenotypes (Gossypium arboreum) in het stadium van het eerste echte blad onder niet-geïnfecteerde omstandigheden. Deze kleurstof bindt specifiek aan hydroxycinnamylaldehyde, zoals coniferylaldehyde en sinapylaldehyde van lignine, in aanwezigheid van zuur en produceert een roze-paarse kleur om lignine te visualiseren. Er werden verschillende lignine-kleuringspatronen waargenomen tussen resistente en gevoelige genotypes, wat wijst op een potentiële rol voor lignine-geassocieerde structurele afweer.
Inleiding
Katoen wordt wereldwijd geteeld voor de vezel en is zeer gevoelig voor bodemgebonden plagen, in het bijzonder nematoden, die aanzienlijke opbrengstverliezen kunnen veroorzaken. Onder deze is de niervormige nematode (Rotylenchulus reniformis) een belangrijke pathogeen die katoen en andere gewassen wereldwijd treft, met uitgesproken effecten in het zuiden van de Verenigde Staten, waar infestaties de opbrengsten met meer dan 50% kunnen verminderen1. Dit microscopische, in de bodem levende organisme parasiteert de katoenwortels2, waardoor de plantvitaliteit, biomassa en vezelopbrengst worden aangetast door verstoring van de water- en nutriëntenopname en de vorming van voedingsplaatsen (Figuur 1). Infectie met de niervormige nematode verandert de groei van de katoenplant door de bloeitijd te vertragen, de grootte en het aantal bollen te verminderen en de pluiskwaliteit te verslechteren3. Ernstige verliezen zijn gerapporteerd in Mississippi, Alabama en Louisiana4. Nematiciden worden veelvuldig ingezet om nematode-infestaties te beheersen, maar hun hoge kosten en negatieve impact op het milieu en de menselijke gezondheid hebben de noodzaak voor alternatieven vergroot5,6. De ontwikkeling van resistent kiemplasma vormt een veelbelovende aanpak om de schade door de niervormige nematode te beperken4. Omdat nematoden zich voeden in wortelweefsels, wordt verondersteld dat afweer mechanismen op basis van de celwand, in het bijzonder lignificatie, de invasie beperken, pathogeen-afgeleide celwand-afbrekende enzymen remmen en de vestiging en uitbreiding van voedingsplaatsen van nematoden beperken7,8,9. Verhoogde lignificatie is gecorreleerd aan een verminderde vatbaarheid voor pathogenen bij diverse plantensoorten10,11,12,13,14. Voorgaand onderzoek bij katoen heeft de expressie van lignine- en laccase-genen gekoppeld aan resistentie tegen Verticillium dahliae15 en studies bij Fusarium-resistente en -gevoelige cultivars onthulden hogere lignineniveaus in resistente cultivars16. Vergelijkbare waarnemingen bij Arabidopsis en rijst, waarbij suppressie van lignine-biosynthesegenen de vatbaarheid verhoogde, onderstrepen het belang van lignificatie bij de plantafweer.
Lignine is een complex fenolisch biopolymeer dat voorkomt in de secundaire celwanden van vaatplanten, waar het zorgt voor structurele stijfheid, mechanische sterkte en hydrofobiteit17. Lignine wordt gesynthetiseerd via de shikimaat- en fenylpropanoïdpaden en is na cellulose het meest voorkomende terrestrische biopolymeer, goed voor ongeveer 30% van de organische koolstof op aarde18,19. Door het cellulose-hemicellulose-netwerk te versterken, verstevigt lignine draagvlakweefsels en ondersteunt het de algehele plantontwikkeling. Lignine is vooral prominent aanwezig in zeer gespecialiseerde weefsels zoals xyleem, sclerenchym, floeemsvezels en periderm, waardoor een waterafstotende barrière ontstaat die essentieel is voor het efficiënte transport van water en mineralen. Naast structurele functies werkt lignine als een biochemische en fysieke afweerbarrière, waardoor de binnendringing van pathogenen wordt beperkt en schade door biotische en abiotische stress wordt geminimaliseerd20,21,22. Lignificatie is een dynamisch proces dat centraal staat bij de resistentie tegen een breed spectrum aan pathogenen, waaronder necrotrofen, biotrofen en hemibiotrofen. De biosynthese uit de primaire monolignolen sinapyl-, coniferyl- en p-coumarylalcohol varieert per soort, weefseltype en ontwikkelingsstadium, wat de graad van resistentie beïnvloedt. Invasie door pathogenen of abiotische stress triggert vaak lokale ligninedepositie, waardoor de plantafweer verder wordt versterkt23,24.
Het ontrafelen van de rol van lignine bij resistentie tegen de niervormige nematode is cruciaal voor het verbeteren van beheerstrategieën voor katoen. Visuele en biochemische karakterisering van de lignineverdeling biedt inzicht in de ruimtelijke en temporele dynamiek van celwandmodificaties die ten grondslag liggen aan vroege afweerreacties. Deze studie maakt gebruik van histochemische phloroglucinolkleuring om lignineafzettingspatronen te analyseren die van nature voorkomen in resistente en gevoelige katoengenotypes voor de niervormige nematode, wat een praktisch voorlopig kader biedt voor het evalueren van celwandgerelateerde resistentiekenmerken en het informeren van veredelingsprogramma's gericht op het verbeteren van de veerkracht van gewassen.
Protocol
De experimenten werden uitgevoerd in een kas met gebruikmaking van het hieronder beschreven plantmateriaal. Alle chemicaliën, apparatuur en reagentia die in deze studie zijn gebruikt, staan gedetailleerd in de Tabel met materialen.
Plantmateriaal
Zaden werden verkregen voor zowel vatbaar (A2‑20, PI 129742; A2‑40, PI 183202) als resistent kiemplasma (A2‑514, PI 616008; A2‑995, PI 629323). Daarnaast werd Deltapine 16, een vatbare cultivar, in deze studie opgenomen. De zaden werden in steriel water geplaatst en 24 u bij kamertemperatuur geweekt. Na het weken werden de zaden grondig gespoeld met vers steriel water om resterende verontreinigingen te verwijderen. De gespoelde zaden werden vervolgens overgebracht naar steriele Petrischalen die bekleed waren met vooraf bevochtigde, geautoclaveerde papieren handdoeken en 2 dagen bij kamertemperatuur geïncubeerd om de kieming te bevorderen (Figuur 2).
Kassenbeplanting
Plastic potten werden gevuld met vooraf bevochtigd vochtregulerend potgrondmengsel. De grond werd twee dagen vóór het verpotten voorbewat. De gekiemde zaailingen werden vervolgens voorzichtig verpot in de voorbewatte grond en gehouden onder gecontroleerde kashuishouding bij dag/nachtcycli van 28 °C/25 °C tot het stadium van de echte bladeren (Figuur 2). Voor elk genotype werden drie biologische replica's geplant.
Monsterverzameling
Planten in het stadium van de eerste echte bladeren werden voorzichtig uit de bodem verwijderd door het omringende bodemmedium los te maken om wortelschade te minimaliseren. De wortels werden 2–3 keer afgespoeld met water om aanhechtende bodemdeeltjes te verwijderen. Wortel- en scheutweefsels van elk genotype werden verzameld voor doorsneden (Figuur 3).
Bereiding van de phloroglucinol-kleuringsoplossing
Een 3% phloroglucinol-oplossing werd bereid door 0,45 g phloroglucinol op te lossen in een mengsel van twee delen 100% ethanol (10 mL) en één deel geconcentreerd HCl (5 mL) in een zuurkast. De kleuringsoplossing werd bereid volgens een eerder beschreven methode16.
Bereiding van coupes en kleuringsprocedure voor histochemische analyse van lignine
Wortel- en scheutweefsels werden gesneden met een steriel scheermesje om dunne dwarsdoorsneden te verkrijgen (Figuur 3). Verse coupes werden overgebracht naar microscopiepreparaten en gedurende 1 min gedekt met 20 µL van de 3% phloroglucinol-kleuringsoplossing. De coupes werden vervolgens gespoeld met steriel water, gedekt met dekglas en gefotografeerd (Figuur 4, Figuur 5, Figuur 6). Dezelfde procedure werd toegepast op stengelweefsels (Aanvullende Figuur 1).
Microscopische beeldvorming
Beeldvorming werd uitgevoerd met behulp van een digitale microscoop. Voorbereide glazen objectglazen met gekleurde weefselmonsters werden op het platform van de microscoop geplaatst voor beeldvorming. Na initialisatie van de beeldvormingssoftware van de microscoop werden de gewenste vergrotingen van 100x, 200x en 300x geselecteerd in helderveldmodus. Grove en fijne focusinstellingen werden gemaakt om de lignine-kleuringspatronen binnen de weefselcoupes duidelijk te visualiseren. De beelden werden vastgelegd en opgeslagen met hun respectieve monsteridentificatienummers. Vervolgens werd een vergelijkende analyse uitgevoerd door beelden van zowel resistente als gevoelige genotypen te onderzoeken om verschillen in de lignine-kleuring vast te stellen. Beelden van resistente en gevoelige genotypen werden vergeleken met behulp van ImageJ om verschillen in het percentage gekleurd areaal te bepalen met behulp van uniforme drempelwaarden. De resultaten werden geëxporteerd als CSV-bestanden nadat alle drie de replica's waren verwerkt. Vervolgens werden grafieken opgesteld om de resistente en gevoelige genotypen te vergelijken.
Resultaten
Histochemische analyse van resistente en gevoelige katoengenotypes
Histochemisch onderzoek van dwarsdoorsneden van wortels en stengels in het stadium van het eerste echte blad onthulde visuele verschillen tussen resistente en vatbare genotypen, zoals aangetoond in Figuur 4, Figuur 5 en Aanvullende Figuur 1 (dwarsdoorsneden van de stengel). Hogere vergrotingen (100x–300x) boden gedetailleerde beelden van deze verschillen (Figuur 4A–C en Figuur 5A–C voor resistente genotypen en Figuur 4D–F en Figuur 5D–F voor vatbare genotypen). Ligninekleuringspatronen verschilden per weefseltype: resistente genotypen vertoonden lagere of vergelijkbare ligninekleuringspatronen in de stengels, terwijl vatbare genotypen visueel een relatief hogere lignificatie van de stengel vertoonden (Aanvullende Figuur 1A–D).
Kwantitatieve beeldanalyse van ligninekleuring
Deltapine 16, een vatbare cultivar die in deze studie is opgenomen, vertoonde een lagere ligninekleuring (Figuur 6A–C) met waarden voor het percentage gekleurd oppervlak van 12, 17,8 en 16,3 (Figuur 6D). Het vatbare genotype A2-40 had waarden voor het percentage gekleurd oppervlak van 25,2, 19,9 en 28,75, terwijl het resistente genotype, A2-995, waarden voor het percentage gekleurd oppervlak vertoonde van 54,95, 58,71 en 69,85 (Figuur 7). A2-20 had echter waarden voor het percentage gekleurd oppervlak van 16,6, 21,3 en 20,4, terwijl A2-514 waarden voor het percentage gekleurd oppervlak vertoonde van 49,8, 34,1 en 43,38 (Figuur 8). De vergelijking leverde een p-waarde op van 0,06. Omdat deze waarden werden gegenereerd met verschillende drempelwaarden, werd een ImageJ-analyse met uniforme drempelwaarden uitgevoerd met identieke drempels voor kleurtoon, verzadiging en helderheid om de reproduceerbaarheid over de replicaten te waarborgen. Het resistente genotype (A2-514) vertoonde een relatief sterkere kleuring dan het vatbare genotype (A2-20). Het percentage gekleurd oppervlak werd berekend als de verhouding tussen lignine-positieve pixels en het totaal aantal weefselpixels binnen de sectie. De kwantitatieve vergelijking met uniforme drempelwaarden van het vatbare genotype A2-20 en het resistente genotype A2-514 wordt getoond in Figuur 9. Over het algemeen demonstreert de analyse met uniforme drempelwaarden dat er genotype-specifieke verschillen in lignificatie bestaan tussen deze genotypen.
DATABESCHIKBAARHEID:
De ruwe gegevens zijn toegevoegd als een aanvullend bestand.
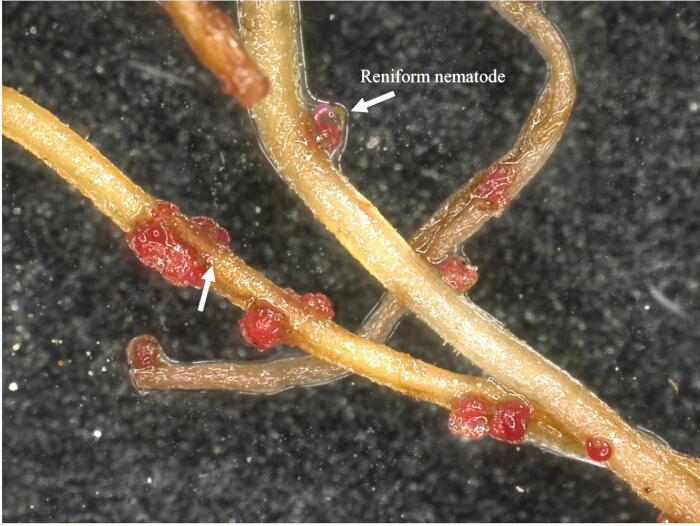
Figuur 1: Microscopisch beeld van niervormige nematoden die zich voeden met katoenwortels. Niervormige nematoden die zich voeden met katoenwortels worden getoond bij een 50x vergroting na kleuring met rode voedselkleurstof. Klik hier om een grotere versie van deze figuur te bekijken.
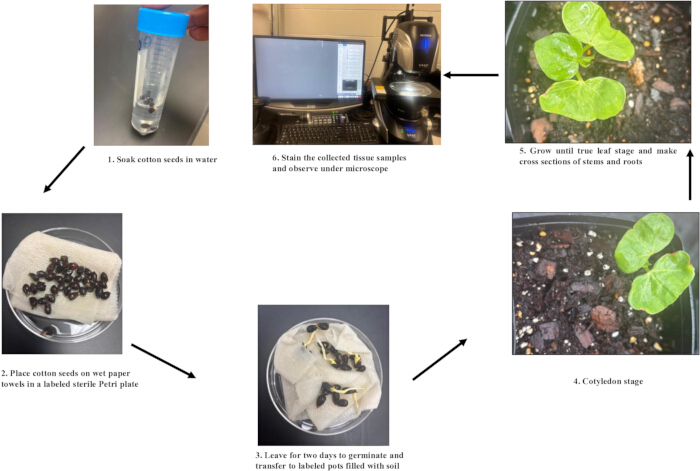
Figuur 2: Voorbereiding van plantmateriaal voor histochemische lignineanalyse. De workflow bestaat uit de volgende stappen: (1) week katoenzaad in water; (2) plaats de zaden op natte papieren handdoeken in een gelabelde steriele Petrischaal; (3) laat de zaden 2 dagen kiemen en verplaats de zaailingen naar gelabelde potten met grond; (4) laat de zaailingen groeien tot het cotyledonstadium; (5) laat de planten verder groeien tot het stadium van de echte bladeren en bereid dwarsdoorsneden van de stengels en wortels voor; en (6) kleur de verzamelde weefselcoupes en observeer deze onder een microscoop. Klik hier om een grotere versie van deze figuur te bekijken.
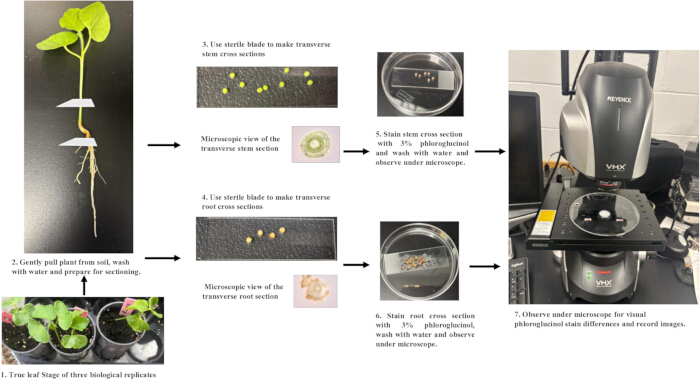
Figuur 3: Verzameling en kleuring van doorsneden van katoenwortels en -stengels met phloroglucinol-HCl. De workflow bestaat uit de volgende stappen: (1) kweek drie biologische replica's tot het stadium van de echte bladeren; (2) verwijder de planten voorzichtig uit de bodem, was ze met water en bereid ze voor op het maken van doorsneden; (3) gebruik een steriel mesje om transversale stengeldorsneden te maken; (4) gebruik een steriel mesje om transversale worteldorsneden te maken; (5) kleur de stengeldorsneden met 3% phloroglucinol-HCl, spoel af met water en observeer onder een microscoop; (6) kleur de worteldorsneden met 3% phloroglucinol-HCl, spoel af met water en observeer onder een microscoop; en (7) observeer de gekleurde doorsneden onder een microscoop om verschillen in phloroglucinol-kleuring te visualiseren en leg afbeeldingen vast. Klik hier om een grotere versie van deze figuur te bekijken.
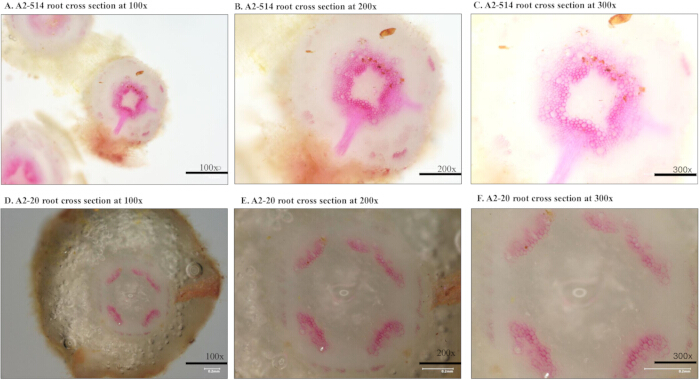
Figuur 4: Ligninekleuring in transversale wortelsecties van katoengenotypes A2-514 en A2-20. Ligninegekleurde transversale wortelsecties van het resistente genotype A2-514 bij (A) 100x, (B) 200x en (C) 300x vergroting. Ligninegekleurde transversale wortelsecties van het gevoelige genotype A2–20 bij (D) 100x, (E) 200x en (F) 300x vergroting. Klik hier om een grotere versie van deze figuur te bekijken.
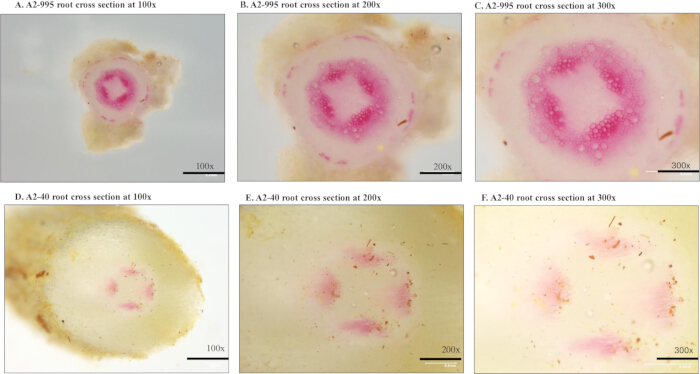
Figuur 5: Ligninekleuring in transversale worteldwarsdoorsneden van katoengenotypes A2-995 en A2-40. Ligninegekleurde transversale worteldwarsdoorsneden van het resistente genotype A2-995 bij (A) 100x, (B) 200x, en (C) 300x vergroting. Ligninegekleurde transversale worteldwarsdoorsneden van het vatbare genotype A2-40 bij (D) 100x, (E) 200x, en (F) 300x vergroting. Klik hier om een grotere versie van deze figuur te bekijken.
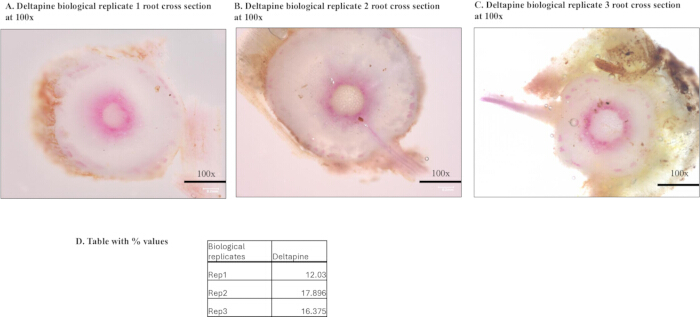
Figuur 6: Ligninekleuring en kwantitatieve analyse van transversale worteldwarsdoorsneden van Deltapine 16. Met lignine gekleurde transversale worteldwarsdoorsneden van drie biologische replica's van de vatbare cultivar Deltapine 16 bij 100x vergroting: (A) biologische replica 1, (B) biologische replica 2, en (C) biologische replica 3. (D) Percentage gekleurd oppervlak voor de drie biologische replica's, bepaald via kwantitatieve ImageJ-analyse. Klik hier om een grotere versie van deze figuur te bekijken.
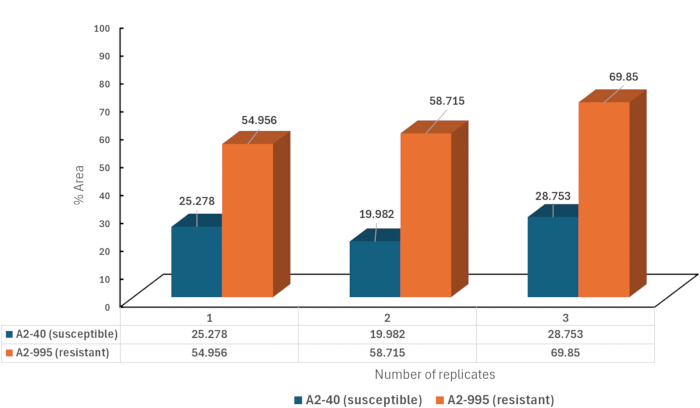
Figuur 7: Kwantitatieve analyse van ligninekleuring in katoengenotypes A2-40 en A2-995. Percentage gekleurd oppervlak bepaald door ImageJ-analyse voor drie biologische replica's van het vatbare genotype A2-40 en het resistente genotype A2-995. Klik hier om een grotere versie van deze figuur te bekijken.
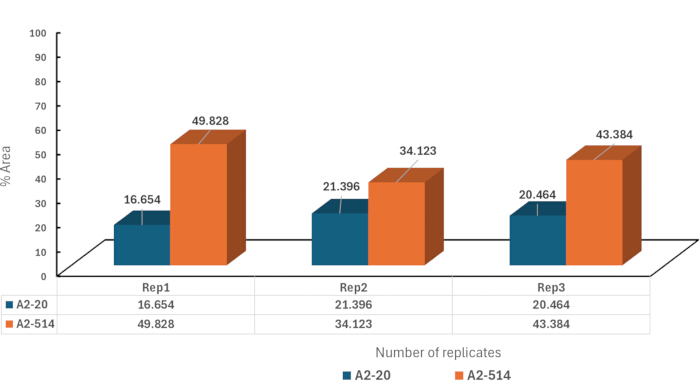
Figuur 8: Kwantitatieve analyse van ligninekleuring in katoengenotypen A2-20 en A2-514. Percentage gekleurd oppervlak bepaald door ImageJ-analyse voor drie biologische replica's van het vatbare genotype A2-20 en het resistente genotype A2-514. Klik hier om een grotere versie van deze figuur te bekijken.
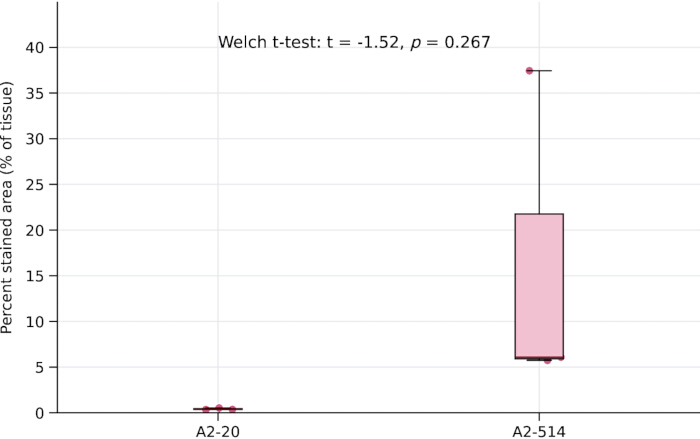
Figuur 9: Kwantificering van ligninekleuring via een uniforme drempelwaarde in katoengenotypes A2-20 en A2-514. Percentage gekleurd areaal in het vatbare genotype A2-20 en het resistente genotype A2-514 na beeldanalyse met een uniforme drempelwaarde. De statistische vergelijking is uitgevoerd met de t-toets van Welch (t = −1.52, p = 0.267). Klik hier om een grotere versie van deze figuur te bekijken.
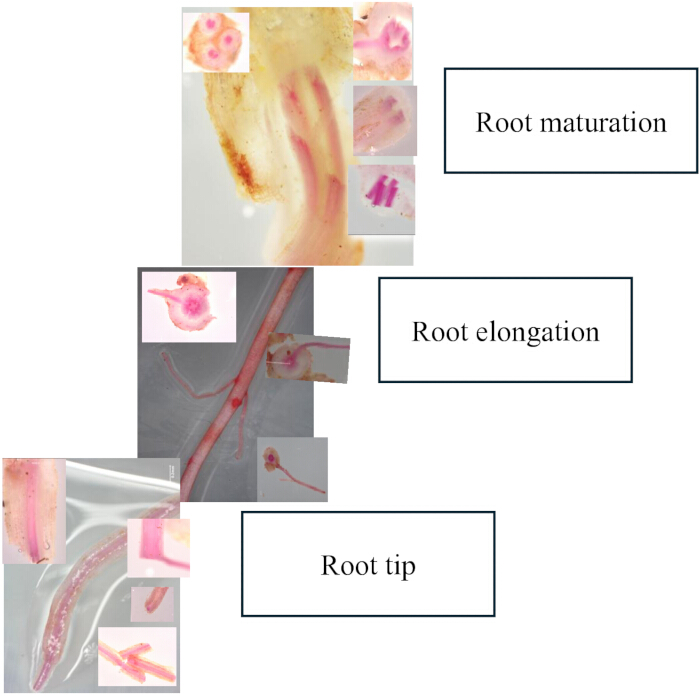
Figuur 10: Visualisatie van ligninekleuring in verschillende wortelregio's. Representatieve afbeeldingen die de ligninekleuring laten zien in de wortelrijpingszone, de wortelstrekkingszone en de wortelpuntregio. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende Figuur 1: Ligninekleuring in transversale stengeldoorsneden van resistente en gevoelige katoengenotypes. Lignine-gekleurde transversale stengeldoorsneden bij een vergroting van 100x van (A) gevoelige A2-20, (B) resistente A2-514, (C) gevoelige A2-40, en (D) resistente A2-995. Klik hier om dit bestand te downloaden.
Discussie
Lignine in plantencelwanden fungeert als een belangrijke fysieke barrière tegen plagen, waaronder nematoden. In de huidige studie vertoonden resistente en vatbare katoengenotypen duidelijke visuele verschillen in ligninekleuring, volgens een patroon dat vergelijkbaar is met wat eerder is gerapporteerd bij Fusarium-resistente en vatbare cultivars. De kleuring maakte een duidelijke visualisatie mogelijk van de lignineverdeling over verschillende wortelregio's—rijping, verlenging en de wortelpunt—waarbij de lignine-intensiteit progressief toenam van de bovenste wortel richting de punt (Figuur 10). Hoewel deze patronen nuttig anatomisch inzicht bieden, werden de ligninedynamieken als reactie op nematodeninfectie in de huidige studie niet geëvalueerd en vereisen deze bevestiging in toekomstig onderzoek. Eerdere studies suggereren dat de aanwezigheid van pathogenen ligninebiosynthese kan induceren, wat de noodzaak onderstreept om veranderingen in lignine onder druk van nematoden te onderzoeken. De toevoeging van biochemische analyses van de hoeveelheid en samenstelling van lignine zou de interpretatie van de waargenomen kleuringspatronen in deze genotypen verder versterken. Over het algemeen benadrukken deze bevindingen de rol van door lignine gemedieerde structurele verdedigingsmechanismen bij de resistentie van katoen tegen reniforme nematoden en tonen ze het nut aan van phloroglucinolkleuring voor het karakteriseren van deze eigenschappen. De voortdurende integratie van anatomische, biochemische en moleculaire benaderingen zal het begrip van de ligninebiosynthese en de bijdrage daarvan aan de ontwikkeling van duurzame resistentie tegen reniforme nematoden verdiepen.
Openbaarmakingen
De auteurs hebben niets te melden.
DISCLAIMERS
USDA is een aanbieder, werkgever en kredietverstrekker die gelijke kansen biedt. De vermelding van handelsnamen of commerciële producten in deze publicatie is uitsluitend bedoeld om specifieke informatie te verschaffen en impliceert geen aanbeveling of goedkeuring door het Amerikaanse Ministerie van Landbouw (U.S. Department of Agriculture). De bevindingen en conclusies in dit artikel zijn die van de auteur(s) en mogen niet worden opgevat als een officiële vaststelling of beleid van de USDA of de Amerikaanse regering.
Dankbetuigingen
De auteurs danken Dr. Katherine Parys voor het verlenen van toegang tot de microscopiefaciliteiten die in deze studie zijn gebruikt. De auteurs danken tevens Dr. Junping Chen en Dr. Abdulraheem voor hun suggesties en hulp bij het verbeteren van het manuscript. Dit onderzoek werd ondersteund door USDA-ARS project 6066-21000-053-00D.
Materialen
| Potgrond met vochtregulatie | Miracle-Gro | 073561005197 032247557832 | Amazon-website |
| Microscoop | Keyence VHX | VHX3000 | Elke vergelijkbare helderveldmicroscoop kan worden gebruikt |
| Steriele scheermesjes | Workpro | W018057 | Amazon-website |
| Snijplank | Freshware | 15.75"L x 9.8"W x 0.3"Th | Amazon-website |
| Objectglaasjes en dekglasjes | Amscope | BS-50P-100S-22X4 | Elk merk kan worden gebruikt. Dit merk is verkrijgbaar via Amazon. |
| Steriel water/ Gedestilleerd water/ geautoclaveerd water | Gibco | 15230147 | Elk merk/ steriel geautoclaveerd water kan worden gebruikt |
| Phlorglucinol-kleuring | Fischer Scientific | AC241761000 | Verkrijgbaar bij Fischer Scientific |
| Geconcentreerd HCl | Fischer Scientific | CAS: 7647-01-0 | Verkrijgbaar bij Fischer Scientific |
| Absolute ethanol | Fischer Scientific | 64-17-5 | Verkrijgbaar bij Fischer Scientific |
| Potten | BTPLASTIK | B0DSBQMXHN | Elke plastic pot kan worden gebruikt, verkrijgbaar via Amazon |
| Petrischalen | Kingdder | B0BS95MCGS | Verkrijgbaar via Amazon; elk ander merk kan ook worden gebruikt |
| Papieren handdoeken | Tork | MB540A | Verkrijgbaar via Amazon; elk ander merk kan ook worden gebruikt |
| Image J | Software | Online beschikbaar | Gratis beschikbare software |
Referenties
- Robinson AF. Reniform in US cotton: when, where, why, and some remedies. Annu Rev Phytopathol. 2007;45(1):263-88.
- Li R, Erpelding JE, Stetina SR. Genome-wide association study of Gossypium arboreum resistance to reniform nematode. BMC Genet. 2018;19(1):52.
- Koebernick JC et al. Response to nematicide by cotton genotypes varying in reniform nematode resistance. Crop Sci. 2021;61(2):929-35.
- Singh B et al. Reniform nematode impact on cotton growth and management strategies: A review. Agron J. 2023;115(5):2140-58.
- Riga E. The effects of Brassica green manures on plant parasitic and free-living nematodes used in combination with reduced rates of synthetic nematicides. J Nematol. 2011;43(2):119.
- Khanal C, McGawley EC, Overstreet C, Stetina SR. The elusive search for reniform nematode resistance in cotton. Phytopathology. 2018;108(5):532-41.
- Moura JCMS et al. Abiotic and biotic stresses and changes in the lignin content and composition in plants. J Integr Plant Biol. 2010;52(4):360-76.
- Schutzendubel A, Polle A. Plant responses to abiotic stresses: heavy metal-induced oxidative stress and protection by mycorrhization. J Exp Bot. 2002;53(372):1351-65.
- Liu Q et al. Transcriptional and physiological analyses identify a regulatory role for hydrogen peroxide in the lignin biosynthesis of copper-stressed rice roots. Plant Soil. 2015;387(1-2):323-36.
- Fujimoto T, Mizukubo T, Abe H, Seo S. Sclareol induces plant resistance to root-knot nematode partially through ethylene-dependent enhancement of lignin accumulation. Mol Plant Microbe Interact. 2015;28(4):398-407.
- Wang Y et al. CmMYB19 over-expression improves aphid tolerance in chrysanthemum by promoting lignin synthesis. Int J Mol Sci. 2017;18(3):619.
- Mandal S, Kar I, Mukherjee AK, Acharya P. Elicitor-induced defense responses in Solanum lycopersicum against Ralstonia solanacearum. ScientificWorldJournal. 2013;2013(1):561056.
- Santiago R, Barros-Rios J, Malvar RA. Impact of cell wall composition on maize resistance to pests and diseases. Int J Mol Sci. 2013;14(4):6960-80.
- Gallego-Giraldo L et al. Elicitors and defense gene induction in plants with altered lignin compositions. New Phytol. 2018;219(4):1235-51.
- Smit F, Dubery IA. Cell wall reinforcement in cotton hypocotyls in response to a Verticillium dahliae elicitor. Phytochemistry. 1997;44(5):811-15.
- Mendu L et al. Lignin and cellulose content differences in roots of different cotton cultivars associated with different levels of Fusarium wilt race 4 (FOV4) resistance-response. J Agric Food Res. 2022;10:100420.
- Tiwari RK et al. Mechanistic insights on lignin-mediated plant defense against pathogen infection. Plant Physiol Biochem. 2025;228:110224.
- Ralph J et al. Lignins: Natural polymers from oxidative coupling of 4-hydroxyphenyl-propanoids. Phytochem Rev. 2004;3(1):29-60.
- Dixon RA et al. The phenylpropanoid pathway and plant defence-a genomics perspective. Mol Plant Pathol. 2002;3(5):371-90.
- Vance CP, Kirk TK, Sherwood RT. Lignification as a mechanism of disease resistance. Annu Rev Phytopathol. 1980;18(1):259-88.
- Nicholson RL, Hammerschmidt R. Phenolic compounds and their role in disease resistance. Annu Rev Phytopathol. 1992;30(1):369-89.
- Shah SWA et al. Lignin-based additive materials: A review of current status, challenges, and future perspectives. Addit Manuf. 2023;74:103711.
- Yadav S, Chattopadhyay D. Lignin: the building block of defense responses to stress in plants. J Plant Growth Regul. 2023;42(10):6652-66.
- Weng JK, Chapple C. The origin and evolution of lignin biosynthesis. New Phytol. 2010;187(2):273-85.