De expressie van plasma LINC0707 is verhoogd bij ruggenmergletsel en bevordert microglia-gemedieerde ontsteking en oxidatieve stress via de miR-145-5p/TRAF6-signaleringsas. Het uitschakelen van LINC0707 vermindert deze pathologische reacties, wat het potentieel ervan als therapeutisch doelwit benadrukt.
Onderzoeksartikel
Silentie van LINC0707 verlicht ontsteking en oxidatieve stress in LPS-gestimuleerde BV2-microglia via de miR-145-5p/TRAF6-as bij ruggenmergletsel
114 weergaven
⸱
11 september 2026
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
dwarslaesies (SCI) veroorzaken levenslange invaliditeit, verminderen het welzijn aanzienlijk en leggen een aanzienlijke sociaaleconomische last op. Deze studie onderzocht de rol van LINC0707 bij SCI via regulatie van de miR-145-5p/TRAF6-signaleringsas. Plasmaproeven van 30 gezonde proefpersonen en 75 patiënten met SCI werden geanalyseerd op de expressie van LINC0707, miR-145-5p en TRAF6 met behulp van RT-qPCR. De associaties tussen plasmaniveaus van LINC0707 en pro-inflammatoire factoren werden beoordeeld bij patiënten met SCI. BV2-microgliacellen werden blootgesteld aan 10 ng/mL LPS, waarna inflammatie- en oxidatieve stress-gerelateerde factoren werden gemeten. Moleculaire interacties werden beoordeeld met behulp van een dual-luciferase reporterassay. Logistische regressieanalyse werd gebruikt om factoren te identificeren die geassocieerd waren met de expressie van LINC0707. De plasmaniveaus van LINC0707 en TRAF6 waren verhoogd bij patiënten met SCI, terwijl de miR-145-5p-niveaus verlaagd waren. Plasmaniveaus van LINC0707 waren positief gecorreleerd met de plasmaniveaus van inflammatoire factoren. LINC0707 fungeerde als een moleculaire spons voor miR-145-5p, en TRAF6 was een doelgen van miR-145-5p. Remming van LINC0707 verminderde de inflammatoire factoren, pro-oxidatieve stressstoffen en de TRAF6 mRNA-niveaus in BV2-cellen. Remming van miR-145-5p produceerde de tegenovergestelde effecten. Deze bevindingen suggereren dat een verhoogde expressie van LINC0707 geassocieerd is met de ernst van SCI en dat knockdown van LINC0707 microglia-gemedieerde inflammatie en oxidatieve stress kan verlichten door regulatie van de miR-145-5p/TRAF6-signaleringsas.
Inleiding
Ruggenmergletsel (SCI) is een traumatische aandoening waarbij het ruggenmerg, een cruciaal onderdeel van het centrale zenuwstelsel, beschadigd raakt. SCI verstoort direct de neurale geleidingspaden tussen het ruggenmerg en de hersenen, wat leidt tot ernstige beperkingen in de motorische, sensorische en autonome functies1,2. Epidemiologische studies hebben een jaarlijkse incidentie gerapporteerd van ongeveer 5 gevallen per 10.0 personen, waarbij de ziektegerelateerde mortaliteit oploopt tot 16,7%3,4. Een Canadese enquête schatte de levenslange rehabilitatiekosten voor elke patiënt met SCI op maximaal US$36.05. De hoge incidentie, mortaliteit en de aanzienlijke kosten die verbonden zijn aan diagnose, behandeling en rehabilitatie maken SCI tot een grote klinische uitdaging die verbeterde therapeutische strategieën vereist.
De pathologische progressie van SCI bestaat uit twee stadia: primair en secundair letsel. Primair letsel is het gevolg van traumatische mechanische compressie of disruptie van het ruggenmergweefsel, terwijl secundair letsel wordt gemedieerd door pathologische processen, waaronder ontsteking en oxidatieve stress6,7. Onder fysiologische omstandigheden draagt microglia-gemedieerde neuro-inflammatie bij aan de homeostase van het centrale zenuwstelsel8,9,10. Na SCI raken microglia echter overmatig geactiveerd en laten zij grote hoeveelheden pro-inflammatoire mediatoren vrij1,12. Deze mediatoren lokken een overmatige productie van reactieve zuurstofcomponenten (ROS) uit, wat leidt tot neuronale beschadiging en sterfte en het secundaire ruggenmergletsel verergert13,14. Daarom vormen het onderdrukken van overmatige microgliële activatie en het onderbreken van de inflammatoire cascade veelbelovende therapeutische strategieën om neurologisch herstel te bevorderen en de uitkomsten na SCI te verbeteren.
Lange niet-coderende RNA's (lncRNA's) vormen een klasse niet-coderende RNA's langer dan 200 nucleotiden die geen eiwitcoderend potentieel hebben15. Hoewel ze aanvankelijk werden beschouwd als transcriptionele "ruis," worden lncRNA's nu erkend als belangrijke regulatoren van diverse fysiologische en pathologische processen16. Recente studies hebben aangetoond dat lncRNA's een kritieke rol spelen bij neuraal letsel. Long intergenic non-protein-coding RNA 707 (LINC0707) is naar voren gekomen als een belangrijke regulator van aandoeningen van het zenuwstelsel. Eerdere studies hebben aangetoond dat LINC0707 traumatisch hersenletsel verergert door microglia-gemedieerde ontsteking te versterken17. Daarnaast hebben Zhu et al. aangetoond dat het uitschakelen van LINC00707 de door lipopolysacharide (LPS)-geïnduceerde ontsteking en apoptose in PC12-cellen significant verminderde18. Deze bevindingen bieden een eerste theoretische basis voor het onderzoeken van de betrokkenheid van LINC0707 bij SCI. Het blijft echter nog te verduidelijken of LINC0707 de microglia-gemedieerde ontsteking tijdens SCI reguleert.
LncRNA's fungeren als moleculaire sponzen via het mechanisme van competitieve endogene RNA (ceRNA), waarbij ze microRNA's (miRNA's) sequestreren en de expressie van stroomafwaartse doelgenen reguleren19. Dit regulatiepatroon is op grote schaal betrokken bij de pathogenese van diverse ziekten. Opmerkelijk is dat miR-145-5p significant is gedownreguleerd in SCI-weefsels20 en tijdens LPS-geïnduceerde beschadiging21, en dat de overexpressie ervan de inflammatoire en oxidatieve stressresponsen van microglia effectief vermindert2. Tumor necrosis factor receptor-associated factor 6 (TRAF6) speelt eveneens een cruciale rol in de pathologie van SCI23,24,25. Desalniettemin moet nog worden opgehelderd of LINC0707, miR-145-5p en TRAF6 gecoördineerde regulatiefuncties uitoefenen bij SCI.
In de huidige studie was de expressie van LINC0707 significant verhoogd in LPS-gestimuleerde microgliacellen. Daarom stelden we de hypothese op dat LINC0707 kan fungeren als een pro-inflammatoire regulator in microglia en dat de knockdown ervan de neuro-inflammatoire respons kan verminderen, waardoor de pathologische progressie van SCI kan worden verlicht. Deze studie onderzocht of LINC0707 de inflammatoire responsen van microglia reguleert en bijdraagt aan de pathogenese van SCI.
Protocol
Deze studie is goedgekeurd door de ethische commissie van het Zhangjiakou First Hospital (goedkeuringsnummer 2024-KY-18). Alle deelnemers zijn geïnformeerd over de doelstellingen en potentiële risico's van de studie en hebben vóór inclusie schriftelijke geïnformeerde toestemming gegeven. Veneuze bloedmonsters werden afgenomen van gezonde controles tijdens routinematige lichamelijke onderzoeken en van patiënten met SCI direct na opname in het ziekenhuis. De laboratoriummetingen werden uitgevoerd door het klinisch laboratorium van het ziekenhuis. De onderzoeksinstrumenten die in dit protocol worden gebruikt, staan vermeld in de Tabel met materialen.
1. Proefpersonen
In totaal werden tussen januari 2023 en januari 2025 75 patiënten met SCI geworven in het Zhangjiakou First Hospital. De inclusiecriteria waren SCI bevestigd door computertomografie (CT) of magnetische resonantie-imaging (MRI) en een tijd tussen het letsel en de ziekenhuisopname van ≤ 12 h. De exclusiecriteria waren een voorgeschiedenis van ruggenmerg- of hersentrauma of chirurgie in de voorafgaande 6 maanden; ernstige cardiovasculaire aandoeningen, waaronder myocardinfarct of aritmie; zwangerschap of lactatie; en maligne tumoren, verminderde lever- of nierfunctie, ernstige cerebrovasculaire aandoeningen of infectieziekten.
Volgens de neurologische classificatiestandaarden van de American Spinal Injury Association (ASIA)26 werden 75 patiënten met SCI ingedeeld in de groepen normale neurologische functie (n = 21), incomplete SCI (n = 36) en complete SCI (n = 18). De verdeling van de letselplaatsen was als volgt: cervicaal, 36,0%; thoracaal, 30,7%; en lumbaal, 3,3%. Er werden willekeurig 30 gezonde individuen geworven, afgestemd op de studiepopulatie, om als controlegroep te dienen. Voor alle deelnemers werden baseline klinische gegevens verzameld. De inclusiecriteria voor gezonde individuen waren: geen voorgeschiedenis van ruggenmerg- of hersentrauma, chirurgie of neurologische aandoeningen; geen voorgeschiedenis van chronische inflammatoire ziekten, auto-immuunziekten of maligniteiten; geen ernstige cardiovasculaire, hepatische of renale aandoeningen; geen acute of chronische infectie in de afgelopen 4 weken; geen zwangerschap of lactatie; en een leeftijd en geslacht die overeenkwamen met de SCI-groep.
De Functional Independence Measure (FIM) werd gebruikt om de functionele onafhankelijkheid bij dagelijkse activiteiten te beoordelen. De maximale FIM-score is 126. Tactiele sensatie, acmesthesie en motorische scores werden gebruikt om de sensorische en motorische functies te evalueren. De maximale scores voor tactiele sensatie en acmesthesie waren 12, en de maximale motorische score was 100. Lagere scores duiden op een ernstiger neurologisch defect.
2. Celkweek, modelconstructie en transfectie
Geïmmortaliseerde muizenmicrogliacellen BV2 werden verkregen van het Cell Resource Center van het Shanghai Institute of Biotechnology. Cellen werden gekweekt in high-glucose Dulbecco's Modified Eagle Medium (DMEM) aangevuld met 10% foetaal runderserum (FBS), penicilline (10 U/mL) en streptomycine (10 U/mL). De cellen werden in stand gehouden bij 37 °C in een bevochtigde incubator met 5% CO₂.
Voor de constructie van het model werden BV2-cellen gedurende 24 h gestimuleerd met 0, 10, 20, 50, 10, 150 of 20 ng/mL lipopolysaccharide (LPS). De optimale LPS-concentratie werd gekozen op basis van de experimentele resultaten.
Voor transfectie werden BV2-cellen gezaaid in 6-well platen en getransfecteerd zodra ze de juiste confluentie hadden bereikt. Een transfectiereagens werd gebruikt in een hoeveelheid van 1,5 µL/well volgens de instructies van de fabrikant. Na 6 u werd het cultuurmedium vervangen door vers medium en werden de cellen nog 24 u verder gekweekt. Het LINC00707-knockdownconstruct, de bijbehorende negatieve controle, het miR-145-5p-oligonucleotide en het bijbehorende controle-oligonucleotide werden elk gebruikt in een concentratie van 50 nM per well. Alle transfectie-experimenten werden onafhankelijk ten minste 5 keer herhaald, met 3 parallelle replica's per onafhankelijk experiment. Gegevens werden statistisch geanalyseerd op basis van de resultaten van ten minste 5 onafhankelijke experimenten.
3. ELISA
De kweeksupernatanten van getransfecteerde en LPS-gestimuleerde BV2-cellen werden geoogst door centrifugatie bij 12,0 × g gedurende 10 min, waarna de spiegels van interleukine-1β (IL-1β), IL-6 en tumornecrosefactor-α (TNF-α) werden gemeten met behulp van de corresponderende ELISA-kits. Kort samengevat werd de assay uitgevoerd door sequentieel te incuberen met een gebiotinyleerd antilichaam, een HRP-streptavidine-conjugaat en een TMB-substraat volgens de instructies van de fabrikant. De absorbentie werd geregistreerd bij 450 nm met een microplate-reader. Cytokinespiegels werden bepaald aan de hand van standaardcurven. Elk monster werd in drievoud gemeten en er werden 6 onafhankelijke experimenten uitgevoerd.
4. ROS-meting
De intracellulaire ROS-niveaus in LPS-gestimuleerde BV2-cellen werden gemeten met een reactive oxygen species assay kit. Kort samengevat werden de cellen 20 min lang geïncubeerd met 10 µmol/L DCFH-DA bij 37 °C. Na incubatie werd het supernatant afgegoten en werden de cellen 3 keer gewassen met fosfaatgebufferde zoutoplossing (PBS) om overtollige extracellulaire sonde te verwijderen. De fluorescentie-intensiteit werd gemeten met een microplate-lezer bij excitatie- en emissiegolflengten van respectievelijk 48 nm en 525 nm. De relatieve ROS-niveaus werden berekend op basis van de fluorescentie-intensiteit. Alle monsters werden in drievoud geanalyseerd en het volledige experiment werd onafhankelijk ten minste 5 keer herhaald.
5. Detectie van malondialdehyde, superoxide dismutase en glutathion
Behandelde BV2-cellen werden verzameld en celhomogenaten werden geprepareerd. Monsters werden gecentrifugeerd bij 12.0 × g gedurende 10 min bij 4 °C om het supernatant te verkrijgen. Commerciële detectiekits voor malondialdehyde (MDA), superoxide dismutase (SOD) en glutathion (GSH) werden gebruikt volgens de instructies van de fabrikant om hun concentraties in de supernatants van de cellen te bepalen. Alle monsters werden in triplikaat geanalyseerd en het gehele experiment werd minimaal 5 keer onafhankelijk herhaald.
6. Duale luciferase-reporterassay
De fragmenten van de 3' onvertaalde regio (3' UTR) van LINC0707 en TRAF6 die de voorspelde miR-145-5p-bindingsplaatsen bevatten, samen met de overeenkomstige gemuteerde sequenties, werden gekloond in de pmirGLO luciferase-reportervector om wild-type (WT-LINC00707 en WT-TRAF6) en gemuteerde (MUT-LINC0707 en MUT-TRAF6) reporterconstructen te genereren. BV2-cellen werden co-getransfecteerd met de reporterconstructen en miR-145-5p-oligonucleotiden en gedurende 24 h gekweekt. Vervolgens werden de cellen geoogst en werden de vuurvlieg- en Renilla-luciferaseactiviteiten gemeten met een microplatereader.
7. RT-qPCR
Totaal RNA werd geëxtraheerd met behulp van een RNA-extractiereagens. De RNA-kwaliteit werd beoordeeld aan de hand van de OD₂₆₀/OD₂₈₀-ratio, waarbij waarden tussen 1,8 en 2,0 als acceptabel werden beschouwd. Ongeveer 1 µg totaal RNA werd omgezet in cDNA met behulp van een reverse transcriptiekit. Genexpressie werd gekwantificeerd via RT-qPCR met een SYBR Green PCR master mix. De reverse transcriptie werd uitgevoerd bij 42 °C gedurende 15 min, gevolgd door inactivatie van de reverse transcriptase bij 95 °C gedurende 3 min. Het gesynthetiseerde cDNA werd bewaard bij −20 °C tot aan de analyse. De kwantitatieve real-time PCR werd uitgevoerd met een pre-denaturatie bij 95 °C gedurende 1 min, gevolgd door 40 cycli van denaturatie bij 95 °C gedurende 5 s en annealing en extensie bij 60 °C gedurende 15 s. Fluorescentiesignalen werden verzameld aan het einde van elke annealing- en extensiestap. De smeltcurve-analyse werd uitgevoerd bij 95 °C gedurende 15 s, gevolgd door 60 °C gedurende 1 min. Relatieve expressieniveaus werden berekend met de 2⁻ΔΔCt-methode. GAPDH of 5S werd gebruikt als interne referentie voor de normalisatie van de genexpressie. De primersequenties waren als volgt: LINC0707, forward 5'-CCAACAGGGTATCAGAATTCTC-3' en reverse 5'-TGCTGACAATAGCCATTAGG-3'; miR-145-5p, forward 5'-GCCGAGGTCCAGTTCCCA-3' en reverse 5'-CTCAACTGGTGTCGTGGA-3'; TRAF6, forward 5'-ATTACAACTGAGGTGCTTCT-3' en reverse 5'-GCATCTGGTTCTGTTATAGGA-3'; GAPDH, forward 5'-ATCCCATCACCATCTTCCAGG-3' en reverse 5'-CGCCCCACTTGATTTTGG-3'; en 5S, forward 5'-TCGTCTGATCTCGGAAGCTAA-3' en reverse 5'-AAGCCTACAGCACCCGGTAT-3'.
8. Statistische analyse
Statistische analyses werden uitgevoerd met behulp van statistische software. De normaliteit van de datadistributie werd beoordeeld met de Shapiro-Wilk-test, waarbij P > 0,05 duidde op een normale distributie. Normaal verdeelde gegevens werden gepresenteerd als het gemiddelde ± SD, terwijl niet-normaal verdeelde gegevens werden gepresenteerd als de mediaan (P25, P75). Voor continue variabelen met een normale distributie werden vergelijkingen tussen 2 groepen uitgevoerd met de Student's t-test, en vergelijkingen tussen meerdere groepen met een eenweg-ANOVA gevolgd door de post hoc-test van Tukey. Voor niet-normaal verdeelde gegevens werd de Mann-Whitney U-test gebruikt voor vergelijkingen tussen 2 groepen, en de Kruskal-Wallis-test voor vergelijkingen tussen meerdere groepen. De chi-kwadraat-test werd gebruikt om categorische variabelen tussen groepen te analyseren. Univariabele en multivariabele logistische regressieanalyses werden gebruikt om klinische factoren geassocieerd met de expressie van LINC0707 te evalueren. Continue variabelen werden gedichotomiseerd op basis van de mediaan van de cohorte (groep met hoge waarde = 1; groep met lage waarde = 0). Variabelen met P < 0,05 in de univariabele logistische regressieanalyse werden opgenomen in de multivariabele logistische regressieanalyse. Resultaten werden gepresenteerd als odds ratio's (ORs) met 95% betrouwbaarheidsintervallen (CIs), waarbij OR > 1 duidde op een positieve associatie en OR < 1 duidde op een negatieve associatie. Alle experimenten naar het celphenotype omvatten ten minste 4 onafhankelijke biologische replica's, met 3 technische replica's per biologische replica. P < 0,05 werd beschouwd als statistisch significant.
Resultaten
Plasmaniveaus van LINC00707 waren verhoogd bij patiënten met SCI
De baseline klinische kenmerken van 30 gezonde proefpersonen en 75 patiënten met SCI werden geanalyseerd. In vergelijking met gezonde proefpersonen hadden patiënten met SCI aanzienlijk lagere scores voor tactiele sensatie, acmesthésie, motoriek en de Functional Independence Measure (FIM), wat wijst op een verminderde sensorische en motorische functie. Daarnaast waren de serumspiegels van pro-inflammatoire cytokinen significant hoger bij patiënten met SCI dan bij gezonde controles (Tabel 1, P < 0,001), wat duidt op een verhoogde ontstekingsreactie.
| Items | HS | SCI | P-waarde |
| (n=30) | (n=75) | ||
| Leeftijd (jaar) | 45.83±10.06 | 46.17±9.92 | 0.786 |
| BMI (kg/m2) | 22.82±1.57 | 23.94±1.29 | 0.69 |
| Geslacht (man, n) | 18 | 41 | 0.619 |
| Roken (n) | 11 | 28 | 0.949 |
| Drinken (n) | 14 | 33 | 0.804 |
| ASIA-classificatie van SCI (n) | / | ||
| Complete SCI | / | 18 | |
| Incomplete SCI | / | 36 | |
| Normale neurale functie | / | 21 | |
| Niveau van SCI-letsel (n, %) | / | ||
| Cervicale wervel | / | 27 (36.0%) | |
| Thoracale wervel | / | 23 (30.7%) | |
| Lumbale wervel | / | 25 (33.3%) | |
| Score voor tactiele sensatie | / | 53.42±22.12 | |
| Acmesthesie-score | / | 53.39±24.68 | |
| Bewegingsscore | / | 49.07±18.74 | |
| Functional Independence Measure-score | / | 71.33±19.41 | |
| IL-1β (pg/mL) | 1.47±0.52 | 52.21±11.32 | <0.001 |
| IL-6 (pg/mL) | 2.14±0.97 | 88.47±23.52 | <0.001 |
| TNF-α (pg/mL) | 2.84±1.13 | 61.09±18.24 | <0.001 |
| CRP (mg/L) | 1.42±0.63 | 62.67±21.85 | <0.001 |
| Afkortingen: HS, gezond subject; SCI, ruggenmergletsel; BMI, body mass index; ASIA, American Spinal Injury Association; FIM, functional independence measure; IL, interleukine; TNF, tumornecrosefactor; CRP, C-reactief proteïne. | |||
Tabel 1: Vergelijking van klinische basiskenmerken tussen gezonde proefpersonen en patiënten met dwarslaesie.Deze tabel vergelijkt demografische kenmerken, neurologische functionele scores, letselgerelateerde variabelen en spiegels van ontstekingsmarkers tussen gezonde proefpersonen en patiënten met dwarslaesie. Afkortingen: HS, gezonde proefpersonen; SCI, dwarslaesie; ASIA, American Spinal Injury Association; FIM, Functional Independence Measure; IL, interleukine; TNF, tumornecrosefactor; CRP, C-reactief proteïne.
De expressie van plasma LINC00707 werd gekwantificeerd met behulp van RT-qPCR. In vergelijking met gezonde proefpersonen vertoonden patiënten met SCI een significant verhoogde expressie van plasma LINC00707 (Figuur 1A, P < 0,001). Analyse van de receiver operating characteristic (ROC)-curve leverde preliminaire bewijzen dat de expressie van LINC00707 mogelijk een zekere discriminerende waarde heeft bij het onderscheiden van patiënten met SCI van gezonde proefpersonen (Figuur 1B). Bovendien nam de expressie van plasma LINC00707 toe bij een toenemende klinische ernst van SCI (Figuur 1C, P < 0,001). Correlatieanalyse toonde aan dat de expressie van plasma LINC00707 positief geassocieerd was met de spiegels van IL-1β (r = 0,635, P < 0,001), IL-6 (r = 0,612, P < 0,001), TNF-α (r = 0,675, P < 0,001) en C-reactief proteïne (CRP; r = 0,611, P < 0,001) (Figuur 1D–G). Deze bevindingen suggereren dat een verhoogde expressie van LINC00707 geassocieerd is met inflammatoire responsen bij patiënten met SCI.
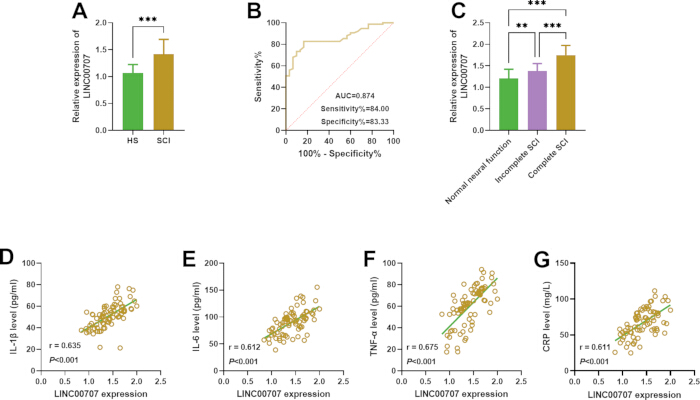
Figuur 1: Plasma LINC00707-expressie en de correlaties hiervan met inflammatoire factoren in het plasma. (A) De plasma LINC00707-expressie was hoger bij patiënten met dwarslaesie (SCI) dan bij gezonde proefpersonen. De statistische analyse werd uitgevoerd met een t-toets voor onafhankelijke steekproeven. (B) Analyse van de receiver operating characteristic (ROC)-curve gaf een eerste indicatie dat LINC00707-expressie nuttig kan zijn om patiënten met SCI te onderscheiden van gezonde proefpersonen. (C) Plasma LINC00707-expressie nam toe bij een toenemende ernst van de SCI volgens de American Spinal Injury Association (ASIA)-classificatie. De statistische analyse werd uitgevoerd met een eenweg-ANOVA gevolgd door de Tukey’s HSD post hoc-toets. (D–G) Plasma LINC00707-expressie was positief gecorreleerd met de spiegels van inflammatoire factoren. Statistische analyse werd uitgevoerd met Pearson-correlatieanalyse. *P < 0,01 en **P < 0,001. Gezonde proefpersonen, n = 30; patiënten met SCI, n = 75. Gegevens worden gepresenteerd als het gemiddelde ± SD. Klik hier om een grotere versie van deze figuur te bekijken.
Factoren geassocieerd met de expressie van LINC00707 werden geanalyseerd met behulp van univariate en multivariate logistische regressie
Univariate en multivariate logistische regressieanalyses werden uitgevoerd om factoren te identificeren die geassocieerd waren met de expressie van LINC00707. Univariate analyse toonde aan dat de ASIA-classificatie van SCI (OR = 3,912, 95% CI: 1,792–8,537, P < 0,001), de FIM-score (OR = 0,281, 95% CI: 0,108–0,729, P = 0,009) en het CRP-gehalte (OR = 4,600, 95% CI: 1,724–12,271, P = 0,002) geassocieerd waren met de expressie van LINC00707. Na correctie voor potentiële confounders toonde multivariate logistische regressie aan dat de ASIA-classificatie van SCI (OR = 2,598, 95% CI: 1,088–6,203, P = 0,032), de FIM-score (OR = 0,303, 95% CI: 0,102–0,902, P = 0,032) en het CRP-gehalte (OR = 3,202, 95% CI: 1,024–10,015, P = 0,045) onafhankelijke factoren waren die geassocieerd waren met de expressie van LINC00707 (Tabel 2). Een ernstiger ASIA-classificatie en verhoogde CRP-gehaltes waren geassocieerd met een hogere expressie van LINC00707, terwijl een hogere FIM-score geassocieerd was met een lagere expressie van LINC00707. Deze associaties ondersteunen verder de mogelijkheid dat LINC00707 betrokken is bij het pathologische proces van SCI.
| Items | Univariaire regressieanalyse | Multivariaire regressieanalyse | ||||
| OR | 95% BI | P-waarde | OR | 95% BI | P-waarde | |
| Leeftijd | 1.176 | 0.475-2.914 | 0.725 | |||
| Geslacht | 1.303 | 0.524-3.240 | 0.57 | |||
| ASIA-classificatie van SCI | 3.912 | 1.792-8.537 | <0.001 | 2.598 | 1.088-6.203 | 0.032 |
| ASIA-classificatie van SCI | 0.588 | 0.497-1.480 | 0.582 | |||
| Score tactiele sensatie | 0.85 | 0.343-2.105 | 0.725 | |||
| Acmesthesiescore | 0.854 | 0.345-2.119 | 0.734 | |||
| Oefenscore | 0.392 | 0.153-1.006 | 0.051 | |||
| FIM-score | 0.281 | 0.108-0.729 | 0.009 | 0.303 | 0.102-0.902 | 0.032 |
| IL-1β | 1.181 | 0.475-2.935 | 0.72 | |||
| IL-6 | 1.453 | 0.585-3.608 | 0.42 | |||
| TNF-α | 1.304 | 0.526-3.233 | 0.567 | |||
| CRP | 4.6 | 1.724-12.271 | 0.002 | 3.202 | 1.024-10.015 | 0.045 |
| Afkortingen: OR, odds ratio; BI, betrouwbaarheidsinterval; ASIA, American Spinal Injury Association; FIM, Functional Independence Measure; IL, interleukine; TNF, tumornecrosefactor; CRP, C-reactief proteïne. | ||||||
Tabel 2: Logistische regressieanalyse van factoren geassocieerd met LINC00707-expressie. Deze tabel presenteert de univariaat- en multivariaat logistische regressieanalyses die zijn gebruikt om klinische factoren te identificeren die geassocieerd zijn met LINC00707-expressie bij patiënten met dwarslaesie. De resultaten worden weergegeven als odds ratio's met 95% betrouwbaarheidsintervallen en de overeenkomstige P-waarden. Afkortingen: OR, odds ratio; CI, betrouwbaarheidsinterval; ASIA, American Spinal Injury Association; FIM, Functional Independence Measure; IL, interleukine; TNF, tumornecrosefactor; CRP, C-reactief proteïne.
LINC00707-knockdown verminderde ontsteking en oxidatieve stress in LPS-gestimuleerde BV2-cellen
BV2-cellen werden behandeld met toenemende concentraties LPS (0, 10, 20, 50, 100, 150 of 200 ng/mL). RT-qPCR-analyse toonde aan dat de expressie van LINC00707 significant toenam na behandeling met 100, 150 en 200 ng/mL LPS (Figuur 2A, P < 0,001, n = 6). Op basis van deze bevindingen en eerdere rapporten27˒28, werd 100 ng/mL LPS gekozen voor het opzetten van het in vitro SCI-model. In vergelijking met de controlegroep was de expressie van LINC00707 significant verhoogd in LPS-gestimuleerde BV2-cellen. Transfectie met si-LINC00707 onderdrukte de expressie van LINC00707 effectief (Figuur 2B, P < 0,001, n = 6).
Vervolgens werden de effecten van LINC00707-knockdown op ontsteking en oxidatieve stress geëvalueerd. LPS-stimulatie verhoogde de secretie van IL-1β (Figuur 2C, P < 0.001, n = 5), IL-6 (Figuur 2D, P < 0.001, n = 5) en TNF-α (Figuur 2E, P < 0.001, n = 5) significant, evenals de intracellulaire ROS-niveaus (Figuur 2F, P < 0.001, n = 6) en het MDA-gehalte (Figuur 2G, P < 0.001, n = 5). In tegenstelling hiermee reduceerde LPS-stimulatie de niveaus van de antioxidant-markers SOD (Figuur 2H, P < 0.001, n = 6) en GSH (Figuur 2I, P < 0.001, n = 5) significant. Het silencing van LINC00707 reduceerde de secretie van pro-inflammatoire cytokinen en de niveaus van pro-oxidatieve stressmarkers significant, terwijl de antioxidant-niveaus in LPS-gestimuleerde BV2-cellen werden hersteld. Deze bevindingen geven aan dat LINC00707-knockdown de door LPS geïnduceerde ontstekingsreacties en oxidatieve stress in BV2-cellen vermindert.
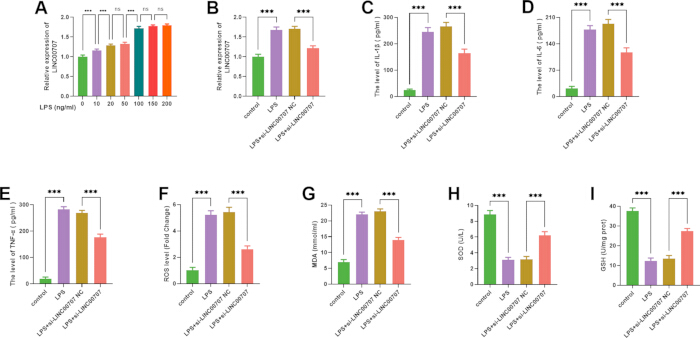
Figuur 2: Effecten van LINC00707-knockdown op inflammatie en oxidatieve stress in LPS-gestimuleerde BV2-cellen. BV2-cellen werden gestimuleerd met 100 ng/mL lipopolysaccharide (LPS). (A) De expressie van LINC00707 werd bepaald via RT-qPCR in BV2-cellen behandeld met verschillende concentraties LPS. (B) De expressie van LINC00707 was verhoogd in de LPS-groep en verminderd na transfectie met si-LINC00707. (C–E) ELISA toonde aan dat de secretie van pro-inflammatoire factoren was verhoogd in de LPS-groep en verminderd na LINC00707-knockdown. (F–G) De niveaus van reactieve zuurstofverbindingen (ROS) en het malondialdehyde-gehalte (MDA) waren verhoogd in de LPS-groep en verminderd na LINC00707-knockdown. (H–I) De superoxide dismutase (SOD)-activiteit en de niveaus van gereduceerd glutathione (GSH) waren verlaagd in de LPS-groep en verhoogd na LINC00707-knockdown. **P < 0,001; ns, niet significant. n ≥ 5. Statistische analyses werden uitgevoerd met behulp van eenweg ANOVA gevolgd door de Tukey's HSD post hoc-test. Gegevens worden gepresenteerd als het gemiddelde ± SD. Klik hier om een grotere versie van deze figuur te bekijken.
LINC00707 fungeert als een moleculaire spons voor miR-145-5p
Om het moleculaire mechanisme ten grondslag aan de biologische functie van LINC00707 te onderzoeken, werd de ENCORI-database gebruikt om potentiële target-miRNA's te voorspellen. Bio-informatische analyse identificeerde complementaire bindingssequenties tussen LINC00707 en miR-145-5p (Figuur 3A). Dual-luciferase reporterassays toonden aan dat de luciferase-activiteit in het WT-LINC00707-construct significant werd verlaagd door de miR-145-5p-mimic en werd verhoogd door de miR-145-5p-remmer. In tegenstelling hiermee had geen van beide behandelingen effect op de luciferase-activiteit in het MUT-LINC00707-construct (Figuur 3B, P < 0,001, n = 4), wat de directe interactie tussen LINC00707 en miR-145-5p bevestigt.
RT-qPCR-analyse toonde aan dat de expressie van plasma miR-145-5p significant verlaagd was bij patiënten met SCI in vergelijking met gezonde proefpersonen (Figuur 3C, P < 0,001). Daarnaast was de expressie van LINC00707 negatief gecorreleerd met de expressie van miR-145-5p (Figuur 3D, P < 0,001), en de spiegels van plasma miR-145-5p namen progressief af naarmate de ernst van de SCI toenam (Figuur 3E, P < 0,001). In vitro was de expressie van miR-145-5p significant verminderd in LPS-gestimuleerde BV2-cellen vergeleken met controlecellen, terwijl knockdown van LINC00707 de expressie van miR-145-5p herstelde (Figuur 3F, P < 0,001, n = 6). Deze bevindingen suggereren dat LINC00707 fungeert als een competing endogenous RNA (ceRNA) door miR-145-5p weg te vangen en daarmee de expressie ervan te reguleren tijdens de pathologische progressie van SCI.
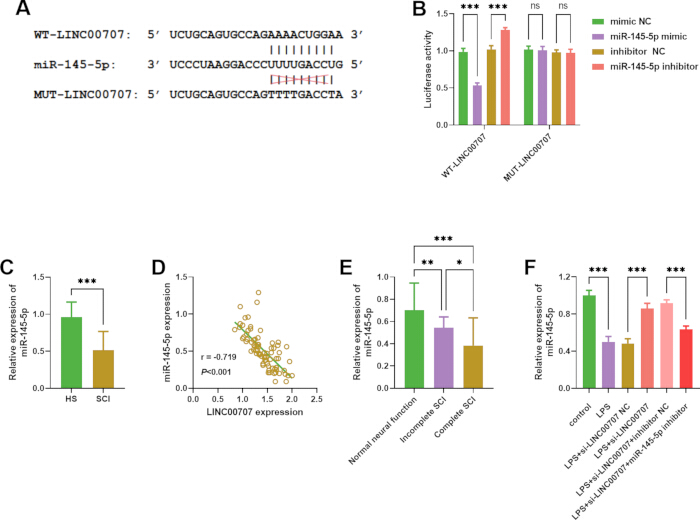
Figuur 3. LINC00707 fungeert als een moleculaire spons voor miR-145-5p. (A) De ENCORI-database voorspelde complementaire bindingssequenties tussen LINC00707 en miR-145-5p. (B) Een dual-luciferase reporter-assay bevestigde de interactie tussen LINC00707 en miR-145-5p. Statistische analyse werd uitgevoerd met een two-way ANOVA gevolgd door de Tukey’s HSD post hoc-test. (C) RT-qPCR toonde aan dat de expressie van plasma miR-145-5p verlaagd was bij patiënten met SCI. Statistische analyse werd uitgevoerd met een independent-samples t-test. (D) LINC00707-expressie was negatief gecorreleerd met miR-145-5p-expressie bij patiënten met SCI. Statistische analyse werd uitgevoerd met Pearson-correlatieanalyse. (E) Plasma miR-145-5p-expressie nam af bij toenemende ernst van SCI volgens de ASIA-classificatie. Statistische analyse werd uitgevoerd met een one-way ANOVA gevolgd door de Tukey’s HSD post hoc-test. (F) miR-145-5p-expressie was verlaagd in de LPS-groep, nam toe na transfectie met si-LINC00707, en nam af na transfectie met de miR-145-5p inhibitor. Statistische analyse werd uitgevoerd met een one-way ANOVA gevolgd door de Tukey’s HSD post hoc-test. P < 0.05, *P < 0.01, en **P < 0.001; ns, niet significant. Gezonde proefpersonen, n = 30; patiënten met SCI, n = 75; celexperimenten, n ≥ 4. Gegevens worden weergegeven als het gemiddelde ± SD. Klik hier om een grotere versie van deze figuur te bekijken.
Remming van miR-145-5p versterkte inflammatie en oxidatieve stress in LPS-gestimuleerde BV2-cellen
Om de rol van miR-145-5p te onderzoeken, werden BV2-cellen getransfecteerd met een miR-145-5p-remmer of de bijbehorende negatieve controle. De spiegels van inflammatoire cytokinen en markers voor oxidatieve stress werden vervolgens geëvalueerd. In vergelijking met de negatieve controlegroep voor de remmer verhoogde de remming van miR-145-5p de secretie van IL-1β (Figuur 4A, P < 0,001, n = 5), IL-6 (Figuur 4B, P < 0,001, n = 5) en TNF-α (Figuur 4C, P < 0,001, n = 5) significant. Daarnaast waren de intracellulaire ROS-spiegels (Figuur 4D, P < 0,001, n = 6) en het MDA-gehalte (Figuur 4E, P < 0,001, n = 5) significant verhoogd, terwijl de SOD- (Figuur 4F, P < 0,001, n = 6) en GSH-spiegels (Figuur 4G, P < 0,001, n = 5) significant waren afgenomen. Deze bevindingen wijzen erop dat remming van miR-145-5p de beschermende effecten van LINC00707-knockdown op LPS-geïnduceerde inflammatie en oxidatieve stress in BV2-cellen tenietdoet.
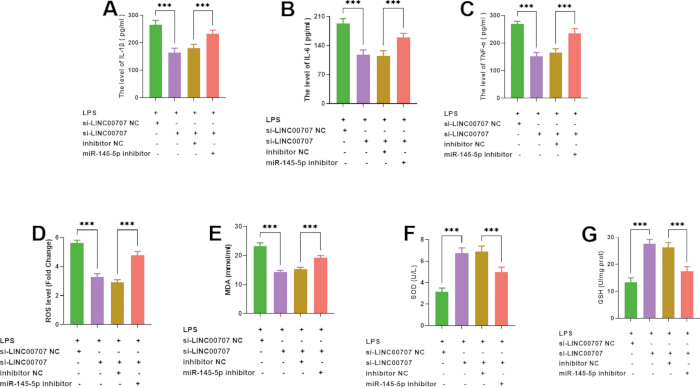
Figuur 4: Effecten van miR-145-5p-inhibitie op inflammatie en oxidatieve stress in BV2-cellen. (A–C) ELISA toonde aan dat de secretie van pro-inflammatoire factoren significant toenam na transfectie met de miR-145-5p-inhibitor. (D–E) De niveaus van reactieve zuurstofspecies (ROS) en het malondialdehyde (MDA)-gehalte waren significant verhoogd na transfectie met de miR-145-5p-inhibitor. (F–G) De superoxide dismutase (SOD)-activiteit en glutathione (GSH)-niveaus waren significant verlaagd na transfectie met de miR-145-5p-inhibitor. **P < 0.001. n ≥ 5. Statistische analyses werden uitgevoerd met behulp van eenweg-ANOVA gevolgd door de Tukey HSD post hoc-test. Gegevens zijn weergegeven als het gemiddelde ± SD. Klik hier om een grotere versie van deze figuur te bekijken.
TRAF6 werd geïdentificeerd als een targetgen van miR-145-5p
De miRDB-database voorspelde TRAF6 als een potentieel target van miR-145-5p. Complementaire bindingssequenties tussen de 3′ UTR van TRAF6 en miR-145-5p werden geïdentificeerd (Figuur 5A). Dual-luciferase reporterassays toonden aan dat de luciferase-activiteit in het WT-TRAF6-construct significant werd verlaagd door de miR-145-5p mimic en verhoogd door de miR-145-5p inhibitor. In tegenstelling hiermee had geen van beide behandelingen invloed op de luciferase-activiteit in het MUT-TRAF6-construct (Figuur 5B, P < 0,001, n = 4), wat bevestigt dat TRAF6 een direct target is van miR-145-5p.
RT-qPCR-analyse toonde aan dat de plasmatische TRAF6 mRNA-expressie significant verhoogd was bij patiënten met SCI (Figuur 5C, P < 0,001). De TRAF6-expressie was negatief gecorreleerd met de miR-145-5p-expressie (Figuur 5D, P < 0,001), en de plasmatische TRAF6 mRNA-niveaus namen toe met de ernst van SCI (Figuur 5E, P < 0,001). In vitro was de TRAF6-expressie significant verhoogd in LPS-gestimuleerde BV2-cellen vergeleken met de controlegroep, maar deze was significant verlaagd na LINC00707-knockdown (Figuur 5F, P < 0,001, n = 6). Omgekeerd herstelde inhibitie van miR-145-5p de TRAF6-expressie (Figuur 5G, P < 0,001, n = 6). Deze bevindingen duiden erop dat LINC00707 de TRAF6-expressie reguleert via de miR-145-5p-signaleringsroute.
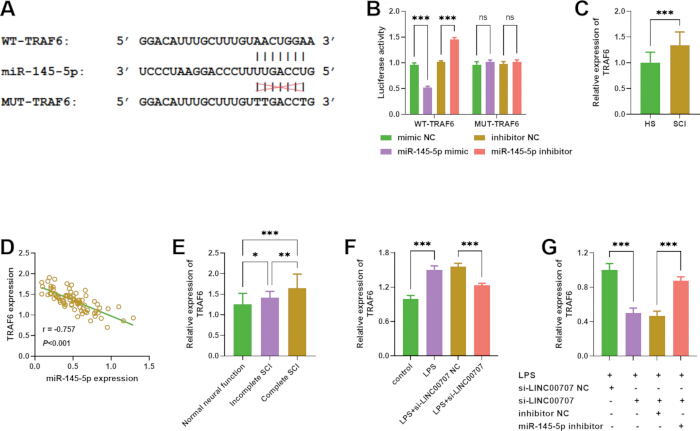
Figuur 5: TRAF6 is een doelgen van miR-145-5p. (A) De miRDB-database voorspelde complementaire bindingssequenties tussen TRAF6 en miR-145-5p. (B) Een dual-luciferase reporter assay bevestigde de targeting-relatie tussen TRAF6 en miR-145-5p. Statistische analyse werd uitgevoerd met een twee-weg ANOVA, gevolgd door de Tukey's HSD post hoc test. (C) RT-qPCR toonde aan dat de expressie van TRAF6 in plasma verhoogd was bij patiënten met SCI. Statistische analyse werd uitgevoerd met een t-test voor onafhankelijke steekproeven. (D) De expressie van TRAF6 was negatief gecorreleerd met de expressie van miR-145-5p in plasma bij patiënten met SCI. Statistische analyse werd uitgevoerd met Pearson-correlatieanalyse. (E) De expressie van TRAF6 in plasma nam toe bij toenemende ernst van SCI volgens de ASIA-classificatie. Statistische analyse werd uitgevoerd met een één-weg ANOVA, gevolgd door de Tukey's HSD post hoc test. (F) De expressie van TRAF6 was verhoogd in LPS-gestimuleerde BV2-cellen en verminderd na knockdown van LINC00707. Statistische analyse werd uitgevoerd met een één-weg ANOVA, gevolgd door de Tukey's HSD post hoc test. (G) De expressie van TRAF6 was verhoogd na inhibitie van miR-145-5p. Statistische analyse werd uitgevoerd met een één-weg ANOVA, gevolgd door de Tukey's HSD post hoc test. P < 0.05, *P < 0.01, en **P < 0.001; ns, niet significant. Gezonde proefpersonen, n = 30; patiënten met SCI, n = 75; celexperimenten, n ≥ 4. Gegevens worden weergegeven als het gemiddelde ± SD. Klik hier om een grotere versie van deze figuur te bekijken.
DATABESCHIKBAARHEID:
De datasets die in de huidige studie zijn gegenereerd en/of geanalyseerd, zijn beschikbaar in de Zenodo-repository: https://doi.org/10.5281/zenodo.21470454.
Discussie
Ruggenmergletsel (Spinal cord injury, SCI) is een ernstige traumatische aandoening van het centrale zenuwstelsel die resulteert in een verminderde of volledige uitval van de neurale geleiding door het ruggenmerg, wat leidt tot levenslange motorische, sensorische en autonome dysfuncties, evenals ingrijpende fysiologische en psychologische gevolgen29˒30. De ernst van deze beperkingen neemt over het algemeen toe met de omvang van het SCI. In de huidige studie was de expressie van plasma LINC00707 verhoogd bij patiënten met SCI en correleerde deze positief met circulerende pro-inflammatoire cytokineniveaus, wat wijst op een potentiële rol voor LINC0707 bij SCI-geassocieerde inflammatie en oxidatieve stress. Op basis van deze klinische bevindingen hebben we de regulerende rol van LINC0707 bij inflammatie en oxidatieve stress in LPS-behandelde BV2-cellen verder onderzocht in de context van de pathogenese van SCI.
LINC0707 is betrokken bij diverse biologische processen via de regulatie van meerdere signaleringspaden31Naast het reguleren van celproliferatie, apoptose, migratie en invasie, is aangetoond dat LINC0707 betrokken is bij ontstekingsreacties en oxidatieve stress18˒32˒33Eerdere studies hebben verhoogde LINC0707-expressie in de longen gerapporteerd34, borst35, cervicaal36, en leverkankers37, waar het de progressie van de ziekte bevordert door downstream moleculaire targets te reguleren. Daarnaast bevordert het uitschakelen van LINC00707 de osteogene differentiatie van mesenchymale stamcellen uit het beenmerg via regulatie van miR-103a-3p38. Zou et al. verder aangetoond dat LINC0707 LPS-geïnduceerde ontstekingsreacties in MRC-5-cellen bevordert, wat de pro-inflammatoire rol ervan ondersteunt33In overeenstemming met deze bevindingen toonde de huidige studie aan dat de expressie van LINC0707 significant was toegenomen in LPS-gestimuleerde BV2-cellen, terwijl knockdown van LINC0707 de productie van pro-inflammatoire cytokinen en markers voor oxidatieve stress verminderde. Deze resultaten ondersteunen verder de betrokkenheid van LINC00707 bij inflammatoire responsen en responsen op oxidatieve stress.
Er is ook gerapporteerd dat LINC0707 functioneert als een concurrerend endogeen RNA (ceRNA) door miR-145-5p te reguleren in verschillende pathologische condities, waaronder reumatische hartziekten39, blaaskanker40 en osteogene differentiatie41. Eerdere studies hebben aangetoond dat miR-145-5p beschermende effecten uitoefent bij SCI door inflammatie en oxidatieve stress te onderdrukken42˒43 en door angiogenese en neuraal herstel te bevorderen4˒45. In overeenstemming met deze waarnemingen toonde de huidige studie aan dat de expressie van plasma miR-145-5p verlaagd was bij patiënten met SCI en in LPS-gestimuleerde BV2-cellen. Verder werd bevestigd dat LINC0707 direct interacteert met miR-145-5p, en het uitschakelen van LINC00707 herstelde de expressie van miR-145-5p. Bovendien maakte remming van miR-145-5p de beschermende effecten van LINC0707-knockdown op inflammatoire responsen en oxidatieve stress ongedaan. Deze bevindingen suggereren dat LINC0707 kan bijdragen aan de progressie van SCI door het reguleren van miR-145-5p-gemedieerde inflammatoire responsen en oxidatieve stressresponsen.
Eerdere studies hebben aangetoond dat TRAF6 een belangrijke rol speelt bij ziekten van het centrale zenuwstelsel46. Er zijn ook aanwijzingen dat het remmen van TRAF6 SCI aanzienlijk kan verbeteren47˒48. De huidige studie identificeerde TRAF6 verder als een direct doelwit van miR-145-5p. De expressie van TRAF6 was significant verhoogd bij patiënten met SCI en in LPS-gestimuleerde BV2-cellen. Daarnaast verminderde knockdown van LINC0707 de expressie van TRAF6, terwijl inhibitie van miR-145-5p de expressie van TRAF6 herstelde. Deze bevindingen suggereren dat LINC0707 de expressie van TRAF6 via miR-145-5p kan reguleren tijdens SCI.
Deze studie suggereert dat LINC0707 de door microglia gemedieerde ontstekingsreacties en oxidatieve stressschade tijdens SCI kan beïnvloeden door de miR-145-5p/TRAF6-signaleringsas te reguleren. Deze bevinding is consistent met een eerder rapport van Zhu et al., waarin werd aangetoond dat knockdown van LINC0707 de LPS-geïnduceerde ontsteking en apoptose in PC-12-cellen verlichtte; het onderliggende mechanisme in hun studie betrof echter de miR-30a-5p/Neurod1-as18. Gezamenlijk suggereren deze bevindingen dat LINC0707 mogelijk niet via één enkel miRNA-doelwit werkt, maar via verschillende miRNA-netwerken op een celtype-afhankelijke manier, waardoor het bijdraagt aan de pathologische processen van SCI.
Deze studie kent enkele beperkingen. Ten eerste werd alleen de mRNA-expressie van TRAF6 geëvalueerd, terwijl de eiwitexpressie niet is onderzocht. Toekomstige studies zouden validatie op eiwitniveau moeten bevatten, zoals Western blot-analyse, om de regulerende relatie tussen LINC0707, miR-145-5p en TRAF6 verder te karakteriseren. Ten tweede is deze studie uitsluitend op cellulair niveau uitgevoerd met gebruik van een LPS-gestimuleerd BV2-microgliamodel, zonder in vivo validatie. Gezien de complexiteit van de micro-omgeving bij SCI weerspiegelen de huidige bevindingen mogelijk niet volledig de pathofysiologische omstandigheden in vivo. Of LINC0707 soortgelijke pro-inflammatoire effecten uitoefent in diermodellen van SCI moet nog worden bevestigd. Toekomstige studies zullen SCI-diermodellen opzetten om de regulerende rol van LINC0707 en de onderliggende moleculaire mechanismen te valideren. Ten derde, hoewel onze resultaten erop wijzen dat LINC0707 via de miR-145-5p/TRAF6-signaleringsroute de ontsteking beïnvloedt, blijft het onbekend of LINC0707 uitsluitend fungeert als een sponge voor specifieke miRNA's of ook direct bindt aan bepaalde eiwitten. Verder onderzoek is nodig om deze mechanistische details te verduidelijken. Ten vierde was de ROC-curveanalyse gebaseerd op gegevens van één medisch centrum en een relatief klein aantal patiënten. Dit kan hebben geleid tot bias, waardoor de bevindingen preliminair zijn. Grotere multicentrische studies met meer patiënten zijn nodig om het diagnostische potentieel van de geïdentificeerde biomarkers te bevestigen.
De bevindingen van deze studie suggereren dat LINC0707 een potentiële verkennende plasmabiomarker en een therapeutisch doelwit voor SCI kan zijn. De vertaling van deze bevindingen naar klinische toepassingen vereist echter nog enkele aanvullende stappen. Ten eerste moet de potentiële discriminerende waarde van plasma LINC0707 worden geëvalueerd in grotere multicenter-cohorten, onafhankelijke validatiecohorten en relevante trauma- of inflammatoire controlegroepen. Klinische beoordeling en radiologisch onderzoek blijven de primaire methoden voor het diagnosticeren van SCI. Ten tweede moet het therapeutische potentieel van het targeten van LINC0707 worden geëvalueerd in diermodellen om de effectiviteit en veiligheid vast te stellen. Uiteindelijk kan het moduleren van de LINC0707/miR-145-5p/TRAF6-signalering een nieuwe benadering bieden voor het verminderen van neuro-inflammatie en oxidatieve stress bij patiënten met SCI, hoewel er nog aanzienlijk werk nodig is om de kloof tussen fundamenteel onderzoek en klinische praktijk te overbruggen.
Over het algemeen waren de expressie van plasma LINC0707 en TRAF6 verhoogd, terwijl de expressie van miR-145-5p verlaagd was bij patiënten met SCI en in LPS-gestimuleerde BV2-cellen. Knockdown van LINC0707 verminderde ontstekingsreacties en oxidatieve stress via de miR-145-5p/TRAF6-signaleringsas, wat suggereert dat dit regulatiepad een potentieel therapeutisch doelwit kan vormen voor SCI.
Openbaarmakingen
De auteurs verklaren dat zij geen concurrerende belangen hebben.
Dankbetuigingen
Dit werk werd ondersteund door het Medical Science Research Project of Hebei (Subsidie nr. 20251479).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 1,5 mL microcentrifugebuisje | KIRGEN | KG211 | Polypropyleen buis met klikdop, DNase/RNase-vrij, niet-pyrogeen, maximale centrifugale kracht 20.00 × g, voor de opslag en centrifugatie van RNA/eiwitmonsters. |
| 6-wells celkweekplaat | Corning | 3516 | TC-behandelde polystyreenplaat met een platte bodem, steriel en individueel verpakt; het well-volume is 16,8 mL met een groeioppervlak van 9,5 cm² |
| Bloedafnamenaald | Becton, Dickinson and Company | 367283 | BD Vacutainer wegwerpnaald voor bloedafname. Dubbelzijdige naaldontwerp, waarbij het ene uiteinde is bedoeld voor venapunctie en het andere uiteinde verbinding maakt met de houder en de vacuümbuis voor multi-buisafname. Silicone-gecoat om het ongemak voor de patiënt tijdens de insertie te minimaliseren. |
| Bloedafnamebuizen | Becton, Dickinson and Company | 367605 | BD Vacutainer vacuümbuisjes voor bloedafname. Verschillende kleurgecodeerde doppen geven diverse additieven aan, die corresponderen met specifieke laboratoriumtests. |
| BV2 geïmmortaliseerde muis microgliale cellijn | Cell Resource Center van het Shanghai Institute of Biotechnology | RRID: CVCL_0182 | Geïmmortaliseerde muis-microgliacellijn die stabiel microglia-specifieke markers (Iba1, CD1b, F4/80) tot expressie brengt. Na LPS-stimulatie secreteren BV2-cellen pro-inflammatoire cytokinen (IL-1β, IL-6, TNF-α) en intracellulaire ROS en MDA ophopen om de in vivo inflammatoire activatie van microglia na letsel aan het ruggenmerg na te bootsen. Cellen worden gekweekt in DMEM met een hoog glucosegehalte, aangevuld met 10% FBS en 1× penicilline-streptomycine, bewaard bij 37 °C met 5% CO2 bevochtigde incubator; gepassaged bij het bereiken van 70% confluentie–80% confluentie om overactivatie te voorkomen. |
| Cell Malondialdehyde (MDA) Assay Kit | Nanjing Jiancheng Bioengineering Institute | A03-4-2 | Op microplaten gebaseerde colorimetrische kit voor kwantitatieve detectie van cellulair malondialdehyde, een marker voor lipideperoxidatie. MDA reageert onder verhitting met thiobarbituurzuur (TBA) tot rode adducten; de absorbentie wordt gemeten bij 532 nm met een microplaat-spectrofotometer. Geoptimaliseerd voor cellysaatmonsters, high-throughput werking in 96-wells, lineair kwantificeringsbereik dat lage tot matige niveaus van lipideoxidatie in microglia bestrijkt. |
| CO2 incubator | Thermo Scientific | 3111 | bevochtigde watergekoelde CO22 incubator met een inner volume van 184 L, IR CO22 sensor, HEPA-luchtfiltratiesysteem om microbiële contaminatie te minimaliseren. Handhaaft een stabiele kweekomgeving bij 37 °C, 5% CO22 en verzadigde vochtigheid voor langdurige adherente celkweek. |
| Dual Luciferase Reportergene Assay Kit | Beyotime Biotechnology | RG028 | Deze dual-luciferase kit maakt sequentiële kwantitatieve detectie van vuurvlieg-luciferase en Renilla-luciferase in cellysaten mogelijk. Het signaal van vuurvlieg-luciferase wordt eerst gemeten met behulp van luciferinesubstraat; het daaropvolgende Renilla-detectiereagens bevat een krachtige quencher die het >9,9% residuele vuurvlieg-luminescentie, wat een zuivere Renilla-signaalaflezing met coelenterazine-substraat waarborgt. De kit bevat een specifieke cellysebuffer voor lyse van adherente cellen, compatibel met een luminometer voor 96-well microplaten. Het vuurvliegreagens is een vooraf gemengde vloeistof voor direct gebruik; de luminescentiewaarden van vuurvlieg en Renilla worden sequentieel geregistreerd om de genormaliseerde relatieve luciferase-activiteit (vuurvlieg/Renilla-ratio) te berekenen voor ceRNA-targetvalidatie. |
| Dulbecco's Modified Eagle Medium | Gibco | 11995065 | DMEM is een veelgebruikt basaal medium voor het ondersteunen van de groei van veel verschillende zoogdiercellen. Deze formulering bevat een hoge concentratie glucose, L-glutamine, fenolrood en natiumpyruvaat. Het vereist supplementering, gewoonlijk met 10% foetaal runderserum (FBS), en een 5–10% CO2 omgeving om de fysiologische pH te handhaven. |
| Foetaal runderserum | ALLES GROEN | 13011-8611 | FBS van premium kwaliteit, laag endotoxinegehalte, mycoplasma-vrij & bacteriofaag-negatief, toegevoegd aan DMEM in een concentratie van 10% v/v om de celgroei te ondersteunen. |
| GraphPad Prism Versie 9 | GraphPad Software, San Diego, CA, USA | Geen gegevens beschikbaar | Wetenschappelijke grafiek- en statistische analyse-software gespecialiseerd in vitro cel-experimentele data. Alle ruwe qPCR-, ELISA-, oxidatieve stress- en dual-luciferase luminescentie-absorbantiewaarden werden geïmporteerd in Prism 9 om normaliteitscontroles en parametrische/niet-parametrische groepvergelijkingen uit te voeren, alle kwantitatieve figuren te genereren en het gemiddelde te berekenen ± SD, exacte P-waarden en 95% BI's, en exporteer figuren met een hoge resolutie (30 dpi) die voldoen aan de publicatiestandaarden van tijdschriften. De originele .prism-projectbronbestanden van alle grafieken zijn, zoals vereist, gedeponeerd in de openbare datarepository. |
| IBM SPSS Statistics Versie 26.0 | IBM Corporation, Armonk, NY, USA | Niet beschikbaar | Uitgebreid statistisch softwarepakket gebruikt voor het sorteren van baseline-gegevens van klinische monsters, normaliteitstesten (Shapiro-Wilk-test), onafhankelijke/niet-gepaarde t-toets en eenweg-ANOVA met Tukey’correctie voor meervoudige vergelijkingen, de non-parametrische Mann-Whitney U-toets en de berekening van exacte P-waarden en 95% betrouwbaarheidsintervallen voor alle menselijke en cellulaire kwantitatieve datasets. Alle klinische patiëntdemografische gegevens en laboratoriumgegevens werden binnen dit platform verwerkt en geanalyseerd. |
| IL-1β SimpleStep ELISA-kit | Abcam | ab25730 | Deze colorimetrische sandwich-ELISA-kit met één wasstap maakt gebruik van de gepatenteerde SimpleStep-technologie, waardoor de volledige detectieprocedure binnen 90 minuten wordt voltooid. De kit meet kwantitatief rat-interleukine-1β in celcultuursupernatant, serum, EDTA/citraat/heparine-plasmaproeven. De detectiegevoeligheid bereikt 26,58 pg/mL, met een lineair kwantificatiebereik van 54,69–350 pg/mL. Een vooraf gecoate, breekbare 8-well strip-microplate is inbegrepen. Absorbantiesignalen worden gedetecteerd bij 450 nm via een microplatelezer om IL-1 te berekenenβ concentratie |
| IL-6 SimpleStep ELISA-kit | Abcam | ab234570 | Een sandwich colorimetrische SimpleStep ELISA-kit geoptimaliseerd voor de kwantitatieve detectie van rat interleukine-6 (IL-6) in celcultuursupernatant, serum en citraat/EDTA/heparine-plasmaproeven. De kit maakt gebruik van een éénstaps-incubatie en een workflow met één enkele wasstap om de totale analysetijd te verkorten tot 90 min, met een detectiegevoeligheid van 43 pg/mL en een lineair kwantificeringsbereik van 125 pg/mL tot 80 pg/mL. Een vooraf gecoate, breekbare microplate met 8-well strips is inbegrepen; absorbentiewaarden worden afgelezen bij 450 nm met een microplate-spectrofotometer voor de uiteindelijke berekening van de IL-6-concentratie. |
| LightCycler multiwellplaat 96, wit | Roche LifeScience, Zwitserland | 4729692001 | Half-omranden witte polypropyleen reactieplaten met 96 wells, speciaal geoptimaliseerd voor het LightCycler 96 real-time PCR-instrument. De witte wanden van de wells verminderen interferentie door achtergrondfluorescentie en versterken de signaalreflectie om de detectiegevoeligheid voor transcripten met een lage abundantie te verbeteren. Het uniforme dunwandige ontwerp garandeert een consistente thermische geleidbaarheid in alle wells, compatibel met reactievolumes variërend van 10 tot 50 μLDNase/RNase-vrij en pyrogeenvrij voor amplificatie-assays van RNA-afgeleid cDNA. |
| LipofectamineTM 30 transfectiereagens | Thermo Fisher Scientific | L30015 | Lipid-nanodeeltje transfectiereagens in combinatie met P30 Enhancer maakt hoogefficiënte siRNA/plasmide-transfectie in BV2-microglia mogelijk met een lage cytotoxiciteit. |
| lnRcute lncRNA First-Strand cDNA Synthese Kit | TIANGEN | KR202-02 | Deze kit is speciaal geoptimaliseerd voor de reverse transcriptie van long non-coding RNA's (lncRNA's) met een lage abundantie, een variabel GC-gehalte en complexe secundaire structuren. De kit bevat een onafhankelijke gDNA-verwijderingsbuffer om contaminatie door genomisch DNA vóór de reverse transcriptie te elimineren, en een gespecialiseerde lnR-RT-primer mix om full-length lncRNA-templates te verrijken. De gemodificeerde reverse transcriptase maakt een efficiënte synthese van long-strand cDNA mogelijk vanuit een totale RNA-input variërend van 10 ng tot 2 ng. |
| lnRcute lncRNA qPCR-detectiekit (SYBR Green) | TIANGEN | FP402 | Een gespecialiseerde SYBR Green-gebaseerde quantitative PCR-premix voor de kwantificering van lncRNA. De antilichaam-gemedieerde hot-start DNA-polymerase garandeert een hoge amplificatiespecificiteit; H-competitor-componenten verminderen de interferentie van secundaire structuren bij lncRNA-templates met een hoog GC-gehalte. Compatibel met cDNA gegenereerd met de lnRcute lncRNA reverse transcription kit, en geschikt voor de relatieve expressiekwantificering van lncRNA met een lage abundantie. |
| miR-145-5p-oligonucleotiden | Generalbiol (Wuhan, China) | Niet beschikbaar | Synthetische miR-145-5p mimic, inhibitor en overeenkomstige negatieve-controle-oligonucleotiden gebruikt om de miR-145-5p activiteit in BV2-cellen te moduleren. Gebruikt in expressie-, inflammatie-, oxidatieve stress- en dual-luciferase reporterassays. |
| miRcute Plus miRNA First-Strand cDNA Kit | TIANGEN | KR21-02 | Maakt gebruik van een gecombineerde poly(A)-staartaanhechting en reverse transcriptie in een één-buisreactie om de experimentele workflow te vereenvoudigen. De enzymmix bevat E. coli poly(A) polymerase, RNase H-deficiënte reverse transcriptase en RNase-inhibitor, die specifiek gericht is op volwassen enkelstrengs miRNA en amplificatie-interferentie van pre-miRNA met hairpin-structuren voorkomt. Geschikt voor miRNA geëxtraheerd uit cellysaat, plasma en weefselmonsters. |
| miRcute Plus miRNA qPCR-detectiekit (SYBR Green) | TIANGEN | FP41 | SYBR Green premix geoptimaliseerd voor de kwantificering van volwassen miRNA, perfect afgestemd op miRcute reverse transcriptieproducten. Het buffersysteem verbetert de annealing-efficiëntie van primers voor korte miRNA-ampliconen en levert stabiele fluorescentiesignalen en een hoge gevoeligheid voor het detecteren van zwak tot expressie gebrachte miRNA's. U6 snRNA wordt veelvuldig gebruikt als interne referentie voor normalisatie. |
| Penicilline-streptomycine-oplossing (10×) | Beyotime Biotechnology | C022 | Steriel gefilterd mengsel bestaande uit 10.0 U/mL penicilline en 10 mg/mL streptomycine; werkverdunning 1:10 in kweekmedium om bacteriële contaminatie te voorkomen. |
| Reactive Oxygen Species Assay Kit met verdunningsmiddel | Beyotime Biotechnology | S034M | Deze kit maakt gebruik van de DCFH-DA-fluorescente probe om intracellulaire reactieve zuurstofsoorten (ROS) te kwantificeren. DCFH-DA penetreert het celmembraan en wordt door intracellulaire esterase gehydrolyseerd tot DCFH, dat vervolgens door ROS wordt geoxideerd om fluorescent DCF te genereren. Compatibel met 96-wells microplaten en fluorescentie-microplaatlezers voor high-throughput detectie (Ex = 48 nm, Em = 525 nm). Uitgerust met een specifieke probediluent en Rosup-positieve controle-reagens om kleuringssignalen te stabiliseren, geschikt voor de detectie van oxidatieve stress in adherente BV2-microglia zonder cellyse. |
| Reduced Glutathione (GSH) Assay Kit | Nanjing Jiancheng Bioengineering Institute | A06-1-2 | Colorimetrische microplate-kit voor het detecteren van gereduceerd glutathione (GSH), het belangrijkste intracellulaire antioxidant. GSH reageert met dithiodinitrobenzoëzuur (DTNB) om een geel chromogeen product te vormen, waarvan de absorbantie wordt gemeten bij 405 nm op een microplate-lezer. De kit past het standaard buisprotocol aan naar high-throughput detectie in 96-wells microplates voor de analyse van antioxidanten in cellysaten. |
| si-LINC0707 | GenePharma (Shanghai, China) | N.v.t. | Kortstokkend interfererend RNA ontworpen om de expressie van LINC0707 in BV2-cellen te verminderen. Gebruikt voor loss-of-function-experimenten om de effecten van LINC0707-knockdown op ontstekingsreacties, oxidatieve stress, miR-145-5p-expressie en TRAF6-expressie te beoordelen. |
| si-LINC0707 NC | GenePharma (Shanghai, China) | Niet van toepassing | Niet-targeterend klein interfererend RNA gebruikt als negatieve controle voor si-LINC0707-transfectie. Gebruikt om te controleren op aspecifieke effecten van de transfectieprocedure en siRNA-blootstelling. |
| SuperReal PreMix Plus (SYBR Green) | TIANGEN | 4992777 | Universele SYBR Green kwantitatieve PCR-premix voor relatieve kwantificatie van mRNA, bestaande uit hot-start Taq-polymerase, dNTP's, SYBR Green I en ROX-referentiekleurstof voor fluorescentienormalisatie. Lage aspecifieke amplificatie, stabiele amplificatie-efficiëntie, breed toegepast voor de kwantificatie van mRNA-doelgenen (TRAF6, GAPDH etc.). |
| Thermo Scientific™ Sorvall™ ST 8 kleine tafelcentrifuge | Thermo Scientific | 75200709 | De klassieke keuze voor klinische laboratoria, in staat om tot 24 te verwerken × 5/7 mL bloedafnamebuisjes tegelijk. De R-serie is een gekoelde versie, die monsters die centrifugatie bij lage temperaturen vereisen, beter kan beschermen. |
| TIANScript II First-Strand cDNA Synthesis Kit | TIANGEN | GKR107-02 | Ontworpen voor algemene mRNA-omgekeerde transcriptie om cDNA van grote lengte tot 12 kb te genereren. Uitgerust met zowel Oligo(dT)15- als random hexameerprimers voor flexibele primingstrategieën. De gemodificeerde M-MLV-omgekeerde transcriptase leest efficiënt door mRNA-structuren met een hoog GC-gehalte en complexe secundaire structuren, met een brede compatibiliteit voor downstream mRNA-qPCR-amplificatie. |
| TNF-α SimpleStep ELISA-kit | Abcam | ab236712 | Een snelle SimpleStep sandwich ELISA-kit met één enkele wasstap, geoptimaliseerd voor kwantitatieve detectie van tumornecrosefactor-α bij rattenα (TNF-α) in cellcultuursupernatant, serum en diverse plasmaproeven. De totale assayduur is 90 min, met een ultra-hoge sensitiviteit van 1,04 pg/mL en een lineair detectiebereik van 15,63 pg/mL tot 100 pg/mL. Uitgerust met afneembare 8×voorbehandelde plaat met 12 putjes; OD-waarden bij 450 nm worden geregistreerd voor de uiteindelijke TNF-α kwantitatieve berekening |
| Total Superoxide Dismutase (T-SOD) Assay Kit | Nanjing Jiancheng Bioengineering Institute | A01-3-2 | WST-1 chromogene microplatekit voor het detecteren van de totale SOD-enzymactiviteit. SOD elimineert superoxide-anionradicalen en remt de WST-1-reductiereactie. De absorbentie wordt geregistreerd bij 450 nm via een microplatelezer voor de berekening van de activiteit. Geschikt voor celhomogenaten, serum en weefselmonsters, met een stabiele kleurontwikkeling en een hoge reproduceerbaarheid voor de evaluatie van de antioxidantcapaciteit. |
| TRIzol-reagens | Thermo Fisher Scientific | 15596018 | Monofasisch fenol-guanidine-isothiocyanaat-reagens voor éénstapsisolatie van totaal RNA uit gecultiveerde microglia-cellen; extraheert gelijktijdig DNA en eiwit uit identieke monsters. |
Referenties
- Trueblood CT, Singh A, Cusimano MA, Hou S. Autonomic dysreflexia in spinal cord injury: mechanisms and prospective therapeutic targets. Neuroscientist. 2024;30(5):597-611.
- Anderson MA, Squair JW, Gautier M, Hutson TH, Kathe C, Barraud Q, et al. Natural and targeted circuit reorganization after spinal cord injury. Nat Neurosci. 2022;25(12):1584-96.
- Liu Y, Yang X, He Z, Li J, Li Y, Wu Y, et al. Spinal cord injury: global burden from 1990 to 2019 and projections up to 2030 using Bayesian age-period-cohort analysis. Front Neurol. 2023;14:1304153. doi:10.3389/fneur.2023.1304153.
- Sekhon LH, Fehlings MG. Epidemiology, demographics, and pathophysiology of acute spinal cord injury. Spine (Phila Pa 1976). 2001;26(24 Suppl):S2-12.
- Chan BC, Cadarette SM, Wodchis WP, Krahn MD, Mittmann N. The lifetime cost of spinal cord injury in Ontario, Canada: a population-based study from the perspective of the public health care payer. J Spinal Cord Med. 2019;42(2):184-93.
- Van Broeckhoven J, Sommer D, Dooley D, Hendrix S, Franssen A. Macrophage phagocytosis after spinal cord injury: when friends become foes. Brain. 2021;144(10):2933-45.
- Xiao S, Zhong N, Yang Q, Li A, Tong W, Zhang Y, et al. Aucubin promoted neuron functional recovery by suppressing inflammation and neuronal apoptosis in a spinal cord injury model. Int Immunopharmacol. 2022;111:109163. doi:10.1016/j.intimp.2022.109163.
- Li F, Wang Y, Zheng K. Microglial mitophagy integrates the microbiota-gut-brain axis to restrain neuroinflammation during neurotropic herpesvirus infection. Autophagy. 2023;19(2):734-6.
- Beattie MS. Inflammation and apoptosis: linked therapeutic targets in spinal cord injury. Trends Mol Med. 2004;10(12):580-3.
- Brennan FH, Li Y, Wang C, Ma A, Guo Q, Li Y, et al. Microglia coordinate cellular interactions during spinal cord repair in mice. Nat Commun. 2022;13(1):4096. doi:10.1038/s41467-022-31797-0.
- Kwon HS, Koh SH. Neuroinflammation in neurodegenerative disorders: the roles of microglia and astrocytes. Transl Neurodegener. 2020;9(1):42. doi:10.1186/s40035-020-00221-2.
- Zhong J, Qiu X, Yu Q, Chen H, Yan C. A novel polysaccharide from Acorus tatarinowii protects against LPS-induced neuroinflammation and neurotoxicity by inhibiting TLR4-mediated MyD88/NF-κB and PI3K/Akt signaling pathways. Int J Biol Macromol. 2020;163:464-75.
- Han X, Xu T, Fang Q, Zhang H, Yue L, Hu G, et al. Quercetin hinders microglial activation to alleviate neurotoxicity via .the interplay between NLRP3 inflammasome and mitophagy. Redox Biol. 2021;44:102010. doi:10.1016/j.redox.2021.102010.
- Simpson DSA, Oliver PL. ROS generation in microglia: understanding oxidative stress and inflammation in neurodegenerative disease. Antioxidants (Basel). 2020;9(8):743. doi:10.3390/antiox9080743.
- Onoguchi-Mizutani R, Akimitsu N. Long noncoding RNA and phase separation in cellular stress response. J Biochem. 2022;171(3):269-76.
- Zhang Y. LncRNA-encoded peptides in cancer. J Hematol Oncol. 2024;17(1):66. doi:10.1186/s13045-024-01591-0.
- Hu W, Zhou J, Jiang Y, Bao Z, Hu X. Silencing of LINC00707 alleviates brain injury by targeting miR-30a-5p to regulate microglia inflammation and apoptosis. Neurochem Res. 2024;49(1):222-33.
- Zhu S, Zhou Z, Li Z, Shao J, Jiao G, Huang YE, et al. Suppression of LINC00707 alleviates lipopolysaccharide-induced inflammation and apoptosis in PC-12 cells by regulating miR-30a-5p/Neurod1. Biosci Biotechnol Biochem. 2019;83(11):2049-56.
- Long J, Lan W, Shen B, Liao F, Cai H, Li J, et al. LncRNA-miRNA-mRNA network in schizophrenia. J Mol Neurosci. 2025;75(3):104.
- De Gasperi R, Graham ZA, Harlow LM, Bauman WA, Qin W, Cardozo CP. The signature of microRNA dysregulation in muscle paralyzed by spinal cord injury includes downregulation of microRNAs that target myostatin signaling. PLoS One. 2016;11(12):e0166189.
- Lin Y, Liu L, Lin Y, Yang R, Liao S, Xu M, et al. MiR-145 alleviates sepsis-induced inflammatory responses and organ injury by targeting ADAM17. Front Biosci (Landmark Ed). 2024;29(1):44. doi:10.31083/j.fbl2901044.
- Wang C, Gu L, Yang Z, Su J, Wen X. Mume Fructus total flavonoids modulate miR-145-3p expression to inhibit lipopolysaccharide-induced inflammatory cytokine production in BV2 cells. Comb Chem High Throughput Screen. 2026;29. doi:http://dx.doi.org/10.2174/0113862073447531260414195911
- Chen S, Wei J, Huang L, Feng B, Guo W. MiRNA-194-5p inhibits inflammatory response after spinal cord injury via .regulating TRAF6. Minerva Med. 2020;111(6):603-6.
- Lu Y, Jiang BC, Cao DL, Zhang ZJ, Zhang X, Ji RR, et al. TRAF6 upregulation in spinal astrocytes maintains neuropathic pain by integrating TNF-α and IL-1β signaling. Pain. 2014;155(12):2618-29.
- Zhao Y, Li T, Zhang L, Yang J, Zhao F, Wang Y, et al. TRAF6 promotes spinal microglial M1 polarization to aggravate neuropathic pain by activating the c-JUN/NF-κB signaling pathway. Cell Biol Toxicol. 2024;40(1):54. doi:10.1007/s10565-024-09900-6.
- Kirshblum SC, Memmo P, Kim N, Campagnolo D, Millis S, American Spinal Injury Association. Comparison of the revised 2000 American Spinal Injury Association classification standards with the 1996 guidelines. Am J Phys Med Rehabil. 2002;81(7):502-5.
- Xue MT, Sheng WJ, Song X, Shi YJ, Geng ZJ, Shen L, et al. Atractylenolide III ameliorates spinal cord injury in rats by modulating microglial/macrophage polarization. CNS Neurosci Ther. 2022;28(7):1059-71.
- Zhang H, Xiang L, Yuan H, Yu H. PTPRO inhibition ameliorates spinal cord injury through shifting microglial M1/M2 polarization via .the NF-κB/STAT6 signaling pathway. Biochim Biophys Acta Mol Basis Dis. 2024;1870(5):167141. doi:10.1016/j.bbadis.2024.167141.
- Eli I, Lerner DP, Ghogawala Z. Acute traumatic spinal cord injury. Neurol Clin. 2021;39(2):471-88.
- Brouwers E, van der Meent H, Curt A, Maier DD, Abel RF, Weidner N, et al. Recovery after traumatic thoracic and lumbar spinal cord injury: the neurological level of injury matters. Spinal Cord. 2020;58(9):980-7.
- Yao Q, Li Z, Chen D. Review of LINC00707: a novel lncRNA and promising biomarker for human diseases. Front Cell Dev Biol. 2022;10:813963. doi:10.3389/fcell.2022.813963.
- Chen L, Chen Y, Huang J, Zhang J. LncRNA LINC00707 serves as a sponge of miR-382-5p to alleviate lipopolysaccharide-induced WI-38 cell injury through upregulating NKAP in infantile pneumonia. Autoimmunity. 2022;55(5):328-38.
- Zou X, Gao C, Shang R, Chen H, Wang B. Knockdown of lncRNA LINC00707 alleviates LPS-induced injury in MRC-5 cells by acting as a ceRNA of miR-223-5p. Biosci Biotechnol Biochem. 2021;85(2):315-23.
- Ma T, Ma H, Zou Z, He X, Liu Y, Shuai Y, et al. The long intergenic noncoding RNA 00707 promotes lung adenocarcinoma cell proliferation and migration by regulating Cdc42. Cell Physiol Biochem. 2018;45(4):1566-80.
- Li H, Liu Q, Hu Y, Yin C, Zhang Y, Gao P. LINC00707 regulates autophagy and promotes the progression of triple-negative breast cancer by activation of the PI3K/AKT/mTOR pathway. Cell Death Discov. 2024;10(1):138. doi:10.1038/s41420-024-01906-7.
- Fang F, Guo C, Zheng W, Li Q. LINC00707 promotes cell proliferation in cervical cancer via .the miR-374c-5p/SDC4 axis. Biomed Res Int. 2022;2022:5793912. doi:10.1155/2022/5793912.
- Wei M, Lu L, Ma J, Luo Z, Tan X, Wang J. LINC00707 impairs natural killer cell antitumor activity in hepatocellular carcinoma by decreasing YTHDF2 stability. J Cell Mol Med. 2024;28(5):e18106.
- Liu J, Wu M, Feng G, Li R, Wang Y, Jiao J. Downregulation of LINC00707 promotes osteogenic differentiation of human bone marrow-derived mesenchymal stem cells by regulating DKK1 via .targeting miR-103a-3p. Int J Mol Med. 2020;46(3):1029-38.
- Zhao W, Huang G, Ye J. LINC00707 inhibits myocardial fibrosis and immune disorder in rheumatic heart disease by regulating miR-145-5p/S1PR1. Biotechnol Genet Eng Rev. 2024;40(4):3073-86.
- Gao T, Ji Y. Long noncoding RNA LINC00707 accelerates tumorigenesis and progression of bladder cancer via .targeting the miR-145/CDCA3 regulatory loop. Urol Int. 2021;105(9–10):891-905.
- Cai WL, Zeng W, Liu HH, Zhu BY, Liu JL, Liu Y. LncRNA LINC00707 promotes osteogenic differentiation of hBMSCs through the Wnt/β-catenin pathway activated by the LINC00707/miR-145/LRP5 axis. Eur Rev Med Pharmacol Sci. 2020;24(1):18-28.
- Jiang L, Wei ZC, Xu LL, Yu SY, Li C. Inhibition of miR-145-5p reduces spinal cord injury-induced inflammatory and oxidative stress responses via .affecting the Nurr1-TNF-α signaling axis. Cell Biochem Biophys. 2021;79(4):791-9.
- Jiang Z, Zhang J. Mesenchymal stem cell-derived exosomes containing miR-145-5p reduce inflammation in spinal cord injury by regulating the TLR4/NF-κB signaling pathway. Cell Cycle. 2021;20(10):993-1009.
- Park AJ, Fandl HK, Garcia VP, Coombs GB, DeSouza NM, Greiner JJ, et al. Differential expression of vascular-related microRNA in circulating endothelial microvesicles in adults with spinal cord injury: a pilot study. Top Spinal Cord Inj Rehabil. 2023;29(2):34-42. doi:10.46292/sci22-00032.
- Gao C, Yin F, Li R, Ruan Q, Meng C, Zhao K, et al. MicroRNA-145-mediated KDM6A downregulation enhances neural repair after spinal cord injury via .the NOTCH2/Abcb1a axis. Oxid Med Cell Longev. 2021;2021:2580619. doi:10.1155/2021/2580619.
- Dou Y, Tian X, Zhang J, Wang Z, Chen G. Roles of TRAF6 in the central nervous system. Curr Neuropharmacol. 2018;16(9):1306-13.
- Huang T, Jia Z, Fang L, Cheng Z, Qian J, Xiong F, et al. Extracellular vesicle-derived miR-511-3p from hypoxia-preconditioned adipose mesenchymal stem cells ameliorates spinal cord injury through the TRAF6/S1P axis. Brain Res Bull. 2022;180:73-85.
- Wei J, Wang J, Zhou Y, Yan S, Li K, Lin H. MicroRNA-146a contributes to SCI recovery via .regulating TRAF6 and IRAK1 expression. Biomed Res Int. 2016;2016:4013487.