Dit protocol beschrijft de gerichte HPLC-kwantificering van rutina en quercetine in Styphnolobium japonicum knopextract en evalueert het extract in modellen van microglia, microglia-neuron co-cultuur en hypertensie door stikstofmonoxidegebrek. De workflow koppelt de extractbereiding aan eindpunten voor neuroinflammatie, neuronale stress, bloeddruk en de paraventriculaire nucleus.
Onderzoeksartikel
Met HPLC gekwantificeerd Styphnolobium japonicum-extract vermindert microgliële ontsteking en hypertensie bij met L-NAME behandelde ratten
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Neuroinflammatie in de paraventriculaire nucleus (PVN) van de hypothalamus kan bijdragen aan sympathische excitatie en hypertensie. We hebben een extract van knoppen van Styphnolobium japonicum (SJBE; historisch Sophora japonica) geëvalueerd, waarbij rutin en quercetine werden gekwantificeerd via gerichte hogedrukvloeistofchromatografie (HPLC). Het extract werd getest in angiotensin II (Ang II)-gestimuleerde BV-2 microglia, BV-2/mHypoA-2/10 co-culturen met oplosbare factoren, een in vitro neurale stressconditie met een hoog natriumgehalte en ratten met Nω-nitro-L-arginine methylester (L-NAME)-geïnduceerde hypertensie door stikstofmonoxidegebrek. Bij niet-cytotoxische werkconcentraties reduceerde SJBE ontstekings- en oxidatieve stress-eindpunten in BV-2 cellen en was dit geassocieerd met hogere markers voor angiotensin-converting enzyme 2 (ACE2), Mas-receptor (MasR) en angiotensin-(1-7) [Ang-(1-7)]. In co-cultuur reduceerde SJBE de inflammatoire overdracht en neurale stress. Orale toediening van SJBE verlaagde de bloeddrukmetingen via de staartmanchet en was geassocieerd met een hogere PVN ACE2/MasR en Ang-(1-7), een lagere Iba-1 en c-Fos kleuring, en lagere circulerende norepinefrine en cytokinen. MLN-4760 bood in vitro functionele ondersteuning voor de betrokkenheid van ACE2, maar er werden geen in vivo pathway-blokkades of farmacokinetische studies naar hersenexpositie uitgevoerd. De resultaten ondersteunen daarom een associatie tussen SJBE-behandeling, verminderde neuroinflammatoire signalering en een lagere bloeddruk, zonder een causaliteit in de centrale pathway vast te stellen.
Inleiding
Botanische extracten worden in toenemende mate bestudeerd als multicomponent-modulatoren van vasculaire en neuro-immuunziekten. De interpretatie hiervan is afhankelijk van een duidelijke identiteit van de bron, de analytische reikwijdte en chemische consistentie. Styphnolobium japonicum (L.) Schott, historisch bekend als Sophora japonica L., levert het gedroogde bloemknopmateriaal Flos Sophorae Immaturus of Huai Mi1,2. Rutine is een belangrijke kwaliteitsmarker van dit materiaal, dat ook andere bioactieve flavonoïden bevat3. Extractiestudies hebben conventionele en geïntensiveerde benaderingen geëvalueerd voor het terugwinnen van rutine en aanverwante flavonoïden4,5,6. Een recente studie beschrijft daarnaast een groenere workflow voor rutine-extractie uit S. japonicum7. Gerichte HPLC maakt een efficiënte kwantificering van vooraf gedefinieerde markers mogelijk, terwijl chromatografische fingerprinting of multicomponent-profilering vereist is om een bredere chemische consistentie en batch-to-batch consistentie te beoordelen; daarom mogen de huidige metingen van rutine en quercetine niet worden geïnterpreteerd als een volledig fytochemisch profiel.
Rutine en quercetine bieden een plausibele farmacologische basis voor het bestuderen van extracten afgeleid van S. japonicum bij neurovasculaire inflammatie. Rutine en preparaten van S. japonicum-bloemen zijn geassocieerd met een verminderde inflammatoire signalering, waaronder NF-kappaB-gekoppelde responsen en neuroinflammatie8. Experimentele modellen linken rutine verder aan verminderde neuroinflammatie en NF-kappaB-geassocieerde weefselschade9. Quercetine is ook gekoppeld aan cardiovasculaire bioactiviteit en een verbeterde inflammatoire redoxbalans10,11. In microglia-modellen kan quercetine activatie, oxidatieve stress en Toll-like receptor 4 (TLR4)-geassocieerde inflammatoire signalering remmen12,13.
Hypertensie is niet alleen een vasculaire aandoening. Centrale inflammatoire circuits kunnen ook de sympathische drive in stand houden. De paraventriculaire nucleus (PVN) integreert neuroendocriene en autonome signalen die de cardiovasculaire tonus reguleren. Cytokinen van microglia in de hersenen en de PVN zijn gekoppeld aan neurogene hypertensie14, en microglia in de PVN kunnen hemodynamische verstoringen waarnemen en sympathische excitatie bevorderen15. Deze observaties maken communicatie tussen microglia en neuronen binnen de PVN tot een relevant doelwit voor interventies die gericht zijn op het verlagen van de neurogene bloeddrukverhoging16.
De ACE2/Ang-(1-7)/Mas-receptor (MasR)-tak van het renine-angiotensinesysteem biedt één beschermend pad binnen dit centrale netwerk17,18. Overexpressie van ACE2 in de PVN vermindert door angiotensine II geïnduceerde hypertensie en is gekoppeld aan verminderde neuroinflammatie19. Endogene Ang-(1-7)-signalering in de PVN moduleert tevens de sympathische outflow20. Ang II kan angiotensine II type 1 receptor (AT1)/TLR4-gerelateerde redoxpaden in PVN-microglia activeren, waardoor renine-angiotensine-stress wordt gekoppeld aan neuroinflammatie21. De conditie met een hoog natriumgehalte werd uitsluitend gebruikt als een in vitro stressprikkel, niet als surrogaat voor het L-NAME-diermodel. Het blijft onduidelijk of S. japonicum bud extract (SJBE), gekwantificeerd op rutine en quercetine via gerichte HPLC, microgliale inflammatie op deze microglia-neuron-interface kan remmen. De huidige workflow combineert gerichte marker-kwantificering met co-culturemodellen van microglia en oplosbare factoren, en L-NAME-geïnduceerde hypertensie door stikstofmonoxide-deficiëntie. Deze is bedoeld voor een hypothesegestuurde vergelijking van een gedefinieerde SJBE-preparatie, niet voor een uitgebreide fytochemische profilering of het aantonen van blootstelling aan de hersenen; het L-NAME-experiment modelleert niet specifiek PVN-gestuurde neurogene hypertensie. Hier testten we of SJBE door Ang II gedreven microgliale inflammatie onderdrukt, inflammatoire signalering in hypothalamische neuronen beperkt en de bloeddruk verlaagt bij L-NAME-behandelde ratten, en of deze resultaten geassocieerd zijn met ACE2/Ang-(1-7)/MasR-markers.
Protocol
Alle dierprocedures zijn goedgekeurd door de Biomedische Onderzoeksethiek Review Commissie van de Shanxi Datong University (Goedkeuringsnr. 2021029; goedkeuringsperiode, augustus 2021 tot februari 2024) en zijn uitgevoerd in overeenstemming met de institutionele richtlijnen voor de zorg en het gebruik van laboratoriumdieren. De gebruikte reagentia en apparatuur staan vermeld in de Tabel met Materialen.
Materialen en reagentia
Er werden gedroogde, ongeopende bloemknoppen van Styphnolobium japonicum (L.) Schott (syn. Sophora japonica L.; Fabaceae; Flos Sophorae Immaturus/Huai Mi) gebruikt. Het botanische materiaal werd vóór extractie geauthenticeerd door vergelijking met gecertificeerd Sophorae Flos referentiemateriaal van de National Institutes for Food and Drug Control (NIFDC), Peking, China (Cat. No. 121270; Batch No. 121270-201403). Rutine (98%, HPLC) en quercetine (98%, HPLC) dienden als referentiestandaarden. Ang II, MLN-4760, L-NAME en valsartan werden gebruikt zoals aangegeven. Overige reagentia en apparatuur staan vermeld in de Tabel met materialen.
Bereiding en kwaliteitscontrole van S. japonicum knopextract
De bloemknoppen werden in een oven gedroogd bij 80 °C tot een constant gewicht, vermalen en door een zeef van 85-mesh gezeefd. Het poeder werd twee keer reflux-geëxtraheerd met 85% ethanol bij een materiaal-oplosmiddelverhouding van 1:20 (w/v) bij 80 °C gedurende 1,5 h per extractie. De filtraten werden samengevoegd en onder verlaagde druk bij 60 °C ingedikt tot een dik extract, vooraf ingevroren bij −80 °C en gedurende 48–72 h gelyofiliseerd. Het extractierendement werd berekend als de massa van het droge extract gedeeld door de massa van de droge ruwe drug, en gealiquoteerde SJBE-poeder werd bewaard onder condities die herhaalde vries-dooi-cycli of blootstelling aan vocht voorkwamen.
Hoge-prestatie vloeistofchromatografie (HPLC) werd uitgevoerd met apparatuur die is uitgerust met een UV-visuele fotodiode-arraydetector. Analieten werden gescheiden op een C18 reversed-phase kolom (250 mm × 4.6 mm, 5 µm) met methanol-water (65:35, v/v) dat isocratisch werd toegediend bij 1.0 mL/min. De kolom werd op 35 °C gehouden, de detectie werd ingesteld op 360 nm, het injectievolume was 20 µL en de acquisitietijd was 20 min. SJBE werd bereid in een concentratie van 1.0 mg/mL in methanol. Zeven rutin-kalibratieniveaus werden bereid bij 10 µg/mL, 25 µg/mL, 50 µg/mL, 100 µg/mL, 200 µg/mL, 300 µg/mL en 400 µg/mL, en zeven quercetine-kalibratieniveaus werden bereid bij 0.5 µg/mL, 1 µg/mL, 2.5 µg/mL, 5 µg/mL, 10 µg/mL, 25 µg/mL en 50 µg/mL. Standaarden en monsters werden gepasseerd door 0.22 µm polytetrafluoretheleen membraanfilters, waarbij de eerste 0.5 mL filtraat werd weggegooid en de rest werd overgebracht naar HPLC-vials. Elk kalibratieniveau werd dubbel geïnjecteerd en elke SJBE-bereiding werd drievoudig geïnjecteerd. Rutin en quercetine werden geïdentificeerd door matching van de retentietijd met authentieke standaarden binnen ±2% en door concordante fotodiode-array spectra. Elke marker werd gekwantificeerd via externe standaardkalibratie, en verdunde monsters werden opnieuw geanalyseerd wanneer de detectorrespons buiten het toepasbare kalibratiebereik viel.
Analytische prestaties, systeemgeschiktheid en batchbeoordeling
De lineariteit werd geëvalueerd via een kleinsquarenregressie van de piekoppervlakte tegenover de concentratie over de zeven gespecificeerde niveaus. De kalibratie werd geaccepteerd wanneer R2 ten minste 0,999 was en het residuplot geen systematische trend vertoonde. De detectielimiet en de kwantificeringslimiet werden bepaald bij signaal-ruisverhoudingen van respectievelijk ongeveer 3 en 10. Specificiteit werd aangetoond met behulp van een methanol-blank, een mengsel van standaardoplossingen en een SJBE-monster; de afwezigheid van co-eluerende interferenties en de overeenstemming van de analytenspectra met de referentiestandaarden werden bevestigd.
De injectieprecisie werd beoordeeld met zes opeenvolgende injecties van een gemengde standaard. De intra-day precisie werd beoordeeld met zes bepalingen uitgevoerd op dezelfde dag, en de inter-day precisie werd beoordeeld over drie opeenvolgende dagen. De herhaalbaarheid werd geëvalueerd met zes onafhankelijk bereide SJBE-oplossingen, en de stabiliteit van de autosampler werd beoordeeld op 0 h, 4 h, 8 h, 12 h en 24 h. Het herstel werd geëvalueerd bij 80%, 100% en 120% van het oorspronkelijke markerniveau met drie onafhankelijk gespikede preparaten per niveau. De injectieprecisie werd geaccepteerd bij een RSD van het piekareaal ≤2,0%; precisie, herhaalbaarheid en stabiliteit werden geaccepteerd bij een RSD ≤3,0%; en het gemiddelde herstel werd geaccepteerd tussen 95,0%–105,0% met een herstel-RSD ≤3,0%.
Voor elke analytische reeks werd de gemengde standaard zes keer geïnjecteerd. De systeemgeschiktheid werd geaccepteerd wanneer de RSD van de retentietijd ≤1,0% was, de RSD van het piekoppervlak ≤2,0% was, de resolutie ≥1,5 was, de tailing-factor ≤2,0 was en het aantal theoretische schijven voor de rutine-piek ten minste 5.000 bedroeg. De kolom werd opnieuw geëquilibreerd en de systeemgeschiktheidstest werd herhaald wanneer een van de criteria niet werd behaald.
Drie onafhankelijke SJBE-extractiebatches werden geprepareerd en geanalyseerd. Voor elke batch werd het volledige chromatogram bij 360 nm geregistreerd, rutin werd gedefinieerd als de referentiepiek, reproduceerbare gemeenschappelijke pieken werden uitgelijnd, en de relatieve retentietijd, het relatieve piekoppervlak en de gelijkenis van het volledige profiel werden berekend. De consistentie van de vingerafdruk op batchniveau werd geaccepteerd bij een gelijkenis ≥0,90, een RSD van de relatieve retentietijd van gemeenschappelijke pieken ≤2,0% en een RSD van het relatieve piekoppervlak ≤5,0%. De rutina- en quercetinegehaltes werden voor elke batch gerapporteerd, samen met het algemene gemiddelde, de standaarddeviatie en de variatiecoëfficiënt.
Celkweek en behandelingen
De muis BV-2 microgliacellijn en de muis mHypoA-2/10 hypothalamische neuronale cellijn werden verkregen via commerciële bronnen. Cellen werden ontdooid vanuit door de leverancier geauthenticeerde voorraden, gedurende twee passages uitgebreid, geverifieerd op soortidentiteit met behulp van een soortspecifieke PCR-methode en bevestigd als mycoplasmanegatief vóór de experimenten en na het ontdooien van elk nieuw vial. Cellen tussen passage 3 en 20 werden gebruikt.
BV-2 en mHypoA-2/10 cellen werden gekweekt in DMEM met een hoog glucosegehalte, aangevuld met 10% foetaal runderserum en 1% penicilline-streptomycine bij 37 °C in een bevochtigde incubator met 5% CO₂. Het medium werd elke 2 d vervangen en de cellen werden gepasseerd bij een confluentie van 70%–80% met behulp van 0,25% trypsine-EDTA. De cellen werden 24 h vóór de behandeling uitgezaaid en de experimenten werden gestart bij een confluentie van 70%–80%.
Voor de screening van de levensvatbaarheid werden BV-2-cellen gedurende 24 h blootgesteld aan SJBE bij 0 µg/mL, 25 µg/mL, 50 µg/mL, 100 µg/mL, 200 µg/mL of 400 µg/mL. Voor ontstekingsexperimenten werden cellen gedurende 1 h gepreïncubeerd met SJBE in de in de figuur gespecificeerde concentratie of met rutin (50 µmol/L), waarna Ang II (100 nmol/L) werd toegevoegd zonder vervanging van het medium voor nog eens 24 h. Voor experimenten naar ACE2-inhibitie werd MLN-4760 (10 µmol/L) 30 min vóór SJBE toegevoegd, gevolgd door Ang II 1 h na SJBE, waarbij alle middelen gedurende de stimulatieperiode van 24 h aanwezig bleven. SJBE werd in een concentratie van 100 µg/mL gebruikt voor downstream mechanistische experimenten. Ang II en SJBE werden bereid in steriel kweekmedium, terwijl MLN-4760 en rutin werden bereid als dimethylsulfoxide-stocks. De uiteindelijke dimethylsulfoxide-concentratie werd op 0,1% (v/v) gehouden in elke toepasbare groep, inclusief de vehikelcontrole. Er werden drie onafhankelijke kweekexperimenten uitgevoerd, waarbij de technische wells binnen elk experiment werden gemiddeld.
Cellevensvatbaarheidsassay
BV-2-cellen werden gezaaid in 96-wellplaten met 5 × 10³ cellen/well en gedurende 24 u gecultiveerd. Het medium werd vervangen door vers medium dat 0 µg/mL, 25 µg/mL, 50 µg/mL, 100 µg/mL, 200 µg/mL of 400 µg/mL SJBE bevatte. Na 24 u werd 10 µL CCK-8-reagens toegevoegd en werden de cellen 1 u geïncubeerd bij 37 °C. De absorptie werd gemeten bij 450 nm en de celviabiliteit werd uitgedrukt relatief ten opzichte van onbehandelde controlewells. Onafhankelijke cultuurpreparaties werden gebruikt als biologische replica's en technische wells werden uitsluitend gebruikt voor middeling binnen het experiment.
Detectie van ROS-niveaus
Na de behandeling werden BV-2-cellen gedurende 30 min bij 37 °C in het donker geïncubeerd in serumvrij medium met 10 µmol/L DCFH-DA. De cellen werden tweemaal gewassen met PBS, losgemaakt, door een cellzeef van 40 µm geleid en geresuspendeerd in ijskoud PBS. Met behulp van een flowcytometer werden per monster ten minste 10.000 singlet-events geregistreerd, met een excitatie van 488 nm en het FITC/530 ± 15 nm emissiekanaal. De hoofdcellpopulatie werd gegated op basis van forward- en side-scatter area, doubletten werden uitgesloten met forward-scatter area versus height, en de fluorescentiegrens werd vastgesteld met een ongekleurde controle. Voor deze single-color assay was spectrale compensatie niet nodig. Hetzelfde gate-sjabloon werd toegepast op alle gecodeerde monsters en de gemiddelde fluorescentie-intensiteit werd gerapporteerd.
TUNEL-kleuring
Na de co-cultuur werden de neuronale cellen in de onderste kamer 30 min gefixeerd met 4% paraformaldehyde, drie keer gewassen met PBS en 5 min gepermeabiliseerd met 0,3% Triton X-100 in PBS. Per well werd in totaal 50 µL TUNEL-reactiemengsel toegevoegd, waarna de cellen 60 min in het donker bij 37 °C werden geïncubeerd. De monsters werden drie keer gewassen, de kernen werden 10 min tegengekleurd met 1 µg/mL DAPI en de monsters werden gemonteerd. Voor elk van de vijf onafhankelijk bereide co-culturen per groep werden drie vooraf geselecteerde, niet-overlappende velden vastgelegd bij een 200× vergroting met identieke belichtingsinstellingen. TUNEL-positieve kernen werden gekwantificeerd als een percentage van de DAPI-positieve kernen met behulp van een vaste drempelwaarde in ImageJ. De drie velden werden gemiddeld om één waarde op cultuurniveau te verkrijgen voorafgaand aan de statistische analyse.
Neuron-microglia co-culture experiment
Transwell-inserts met vierentwintig putjes, voorzien van polycarbonaatmembranen van 0,4 µm en een groeioppervlak van ongeveer 0,33 cm2, werden gebruikt om non-contact communicatie via oplosbare factoren te modelleren. mHypoA-2/10-cellen werden gezaaid in de onderste putjes met 1 × 10⁵ cellen in 600 µL medium, en BV-2-cellen werden gezaaid in de inserts met 2 × 10⁵ cellen in 100 µL medium. De cellen werden een nacht gekweekt vóór de assemblage. Ang II, SJBE, MLN-4760, rutin en de bijbehorende dragers werden toegevoegd aan het bovenste BV-2-compartiment volgens de hierboven beschreven behandelingsvolgorde. Voor de aanvullende groepen met hoge natriumstress werd NaCl toegevoegd aan het onderste neuronale compartiment om de uiteindelijke concentratie met 30 mmol/L te verhogen. De geassembleerde co-culturen werden gedurende 24 h onderhouden.
Het medium uit de bovenkamer en de BV-2-cellen werden verzameld voor analyses van microgliacytokines en signalering, terwijl het medium uit de onderkamer en de neuronen afzonderlijk werden verzameld voor analyses van Ang-(1-7), qPCR, immunoblotting en TUNEL. Eén geassembleerd paar van insert en onderste put werd beschouwd als één experimentele eenheid, en er werden drie onafhankelijke co-culturexperimenten uitgevoerd. Deze configuratie maakte de uitwisseling van oplosbare factoren mogelijk, maar kon microglia niet vaststellen als het exclusieve directe doelwit van SJBE. Omdat er geen iso-osmotische controle was opgenomen, konden bij de NaCl-conditie natriumspecifieke effecten niet worden onderscheiden van osmotische effecten.
Diermodel voor hypertensie
Specifieke-pathogeen-vrije mannelijke Wistar-ratten in de leeftijd van 6–8 weken en met een gewicht van 180–220 g werden verkregen via commerciële leveranciers. Drie ratten werden per kooi gehuisvest bij 22 °C ± 2 °C en een relatieve vochtigheid van 50%–60% onder een licht/donkercyclus van 12 u met vrije toegang tot voedsel en water. De strooisel werd tweemaal per week vervangen en de dieren werden 7 d geacclimatiseerd. De dieren werden dagelijks geobserveerd en het lichaamsgewicht werd tweemaal per week geregistreerd. Hypertensie geïnduceerd door stikstofmonoxidegebrek werd tot stand gebracht door orale gavage van L-NAME (40 mg/kg/dag in 0,5% CMC-Na; 10 mL/kg) gedurende 3 weken. De geschiktheid van het model werd vóór randomisatie gedefinieerd als een systolische bloeddruk ≥140 mmHg bij twee opeenvolgende metingen. Dit model reproduceerde hypertensie geïnduceerd door stikstofmonoxidegebrek en was niet specifiek voor neurogene hypertensie.
Groepering, toediening en monstername
Ratten werden toegewezen aan een normale controlegroep en een L-NAME modelcohort. Nadat de geschiktheid voor het model was vastgesteld, werden de geschikte hypertensieve ratten toegewezen aan de groepen modelvoertuig, SJBE 100 mg/kg/dag, 200 mg/kg/dag, 400 mg/kg/dag of valsartan 10 mg/kg/dag. Alle gavage-formuleringen werden eenmaal daags toegediend in een volume van 10 mL/kg, en de controlegroepen ontvingen hetzelfde volume 0,5% CMC-Na. Zes ratten per groep (in totaal 36 ratten) vormden de definitieve geanalyseerde steekproef. De initiële inschrijving, sterfgevallen en uitsluitingen werden per groep en per reden gerapporteerd. Dagelijkse gavage werd voortgezet gedurende 6 weken, terwijl de model-afgeleide groepen onder het L-NAME protocol bleven.
Aan het eindpunt werden de ratten geanestheseerd met pentobarbitalnatrium (50 mg/kg, intraperitoneaal), waarna het verlies van de pedale terugtrekkingsreflex werd bevestigd. Bloed (4–6 mL) werd uit de abdominale aorta verzameld in EDTA-buizen. De ratten werden geëuthanaseerd door exsanguinatie onder diepe anesthesie en transcardiaal geperfuseerd met ongeveer 200 mL ijskoud 0,9% zoutoplossing. Bloedmonsters werden gecentrifugeerd bij 2.000 × g gedurende 15 min bij 4 °C, en het plasma werd bewaard bij −80 °C. De hersenen werden onmiddellijk verwijderd. Met behulp van een rattenhersenatlas werd een coronaal blok voorbereid dat ongeveer −1,3 mm tot −2,1 mm vanaf bregma besloeg, en de bilaterale paraventriculaire kernen (PVN) werden gemicrodissecteerd binnen ongeveer 0,3–0,6 mm lateraal van de middellijn en 7,4–8,2 mm ventraal van het schedeloppervlak. Weefsel werd snap-frozen voor RNA- en proteïneanalyses of ingebed voor de bereiding van bevroren coupes van 20 µm.
Randomisatie, toewijzingsverhulling, blindering en exclusiecriteria
Geschikte hypertensieve ratten werden gestratificeerd op basis van lichaamsgewicht en baseline systolische bloeddruk en toegewezen met behulp van een door de computer gegenereerde blokrandomisatielijst met blokken van zes. Een onderzoeker die niet betrokken was bij de dosering of de uitkomstmeting genereerde de sequentie, stelde opeenvolgende groepscodes op en hield de toewijzingslijst geheim tot alle dieren aan de selectiecriteria voldeden. Het dier werd beschouwd als de experimentele eenheid voor bloeddruk-, moleculaire, biochemische en histologische eindpunten.
Gavageformuleringen, monsterbuisjes, weefselaliquoten, coupes, afbeeldingen en assayplaten werden gelabeld met gerandomiseerde driedcijferige diercodes. Onderzoekers die de bloeddrukmetingen, densitometrie, ELISA, beeldacquisitie en beeldanalyse uitvoerden, waren geblinderd voor de toewijzing van de behandeling. De code werd pas onthuld na voltooiing van de vooraf vastgestelde kwaliteitscontroles en de primaire analyse. Dieren werden uitsluitend uitgesloten vanwege niet-behandelingsgerelateerde sterfte, ernstige ziekte of letsel, >20% gewichtsverlies, mislukte gavage, mislukte modelinductie, inadequate staartmanchet-registraties na de herhalingsprocedure, monsterverlies of gedocumenteerde assayfouten. Alle uitsluitingen werden per groep en reden gerapporteerd. Omdat er geen a priori powerberekening beschikbaar was, werd n = 6/groep beschouwd als een exploratieve mechanistische steekproef.
Bloeddrukmeting via de staartmanchet
De bloeddruk werd gemeten met een non-invasief staartmanchet-systeem in een stille ruimte tussen 09:00 en 12:00 uur. De ratten werden gedurende 5 opeenvolgende dagen gewend door ze 15 min/dag in de fixatiehouder te plaatsen. Op elke meetdag werden de dieren 10 min opgewarmd bij 33 °C ± 1 °C, gevolgd door nogmaals 5 min in de fixatiehouder. De eerste vijf opblaas-ontlaascycli werden genegeerd en er werden 10–15 extra cycli geregistreerd. Een sessie werd geaccepteerd wanneer ten minste vijf technisch valide metingen een variatiecoëfficiënt van ≤10% hadden. De bloeddrukwaarde op dierniveau werd berekend als het gemiddelde van de valide metingen. Wanneer aan dit criterium niet werd voldaan, kreeg het dier 10 min rust en werd één cyclusset herhaald. Als het criterium nog steeds niet werd behaald, werd de sessie de volgende dag herhaald en werd de oorspronkelijke sessie als ontbrekend geregistreerd, in plaats van dat individuele metingen selectief werden verwijderd. De staartmanchetmetingen leverden intermitterende schattingen van de bloeddruk op en boden geen continue telemetrie.
ELISA
Supernatanten van celculturen, PVN-homogenaten en plasma werden verwerkt met behulp van assaykits die waren afgestemd op de analyt en de soort: muis TNF-α, muis IL-1β, muis IL-6, rat TNF-α, rat IL-1β, Ang-(1-7) en norepinefrine. Celsupernatanten werden geklaard bij 1.000 × g gedurende 10 min bij 4 °C. PVN-weefsel werd gehomogeniseerd in een verhouding van 1:9 (w/v) in ijskoud PBS met protease-remmers en gecentrifugeerd bij 12.000 × g gedurende 15 min bij 4 °C. Plasma werd slechts eenmaal op ijs ontdooid. Reagentia werden gedurende 30 min op kamertemperatuur gebracht. Een volume van 100 µL standaarden en monsters werd in technisch duplikaat toegevoegd en 2 u geïncubeerd bij 37 °C, gevolgd door vijf wasbeurten met 300 µL wasbuffer. Vervolgens werd 100 µL gebiotinylleerd detectie-antilichaam toegevoegd en 1 u geïncubeerd bij 37 °C. Platen werden vijf keer gewassen, gevolgd door de toevoeging van 100 µL mierikswortelperoxidase-conjugaat en incubatie gedurende 30 min bij 37 °C. Na nog een wasstap werd 90 µL TMB-substraat toegevoegd en werden de platen 15 min in het donker ontwikkeld. Er werd vervolgens 50 µL stopoplossing toegevoegd en de absorbentie werd binnen 5 min gemeten bij 450 nm met een microplate-reader. Concentraties werden berekend met behulp van een vierparameter logistische standaardcurve. Dubbele metingen werden geaccepteerd wanneer de variatiecoëfficiënt ≤15% was; monsters buiten het gekalibreerde bereik werden verdund en opnieuw geanalyseerd.
Kwantitatieve Real-Time PCR
Totaal RNA werd geëxtraheerd uit cellen of PVN-weefsel met behulp van TRIzol-reagens. De RNA-zuiverheid werd beoordeeld aan de hand van de A260/A280-ratio, en 1 µg RNA werd gebruikt voor cDNA-synthese met Evo M-MLV reverse-transcription premix. Elke qPCR-reactie van 20 µL bevatte 10 µL 2× SYBR Green master mix, 0,4 µL van elk van de 10 µmol/L forward- en reverse-primers, 2 µL verdund cDNA en 7,2 µL nucleasevrij water. Reacties werden in technische triplicaten uitgevoerd op een real-time PCR-detectiesysteem. De cycluscondities waren 95 °C gedurende 30 s, gevolgd door 40 cycli van 95 °C gedurende 5 s en 60 °C gedurende 30 s. Vervolgens werd een smeltcurve gegenereerd van 65 °C tot 95 °C in stappen van 0,5 °C. Controles zonder template en zonder reverse-transcriptie werden meegenomen. Een assay werd alleen geaccepteerd wanneer er een enkele smeltpiek en een standaardcurve-efficiëntie van 90%–110% werden waargenomen. De relatieve genexpressie werd berekend met de 2⁻ΔΔCt-methode met Gapdh als referentiegen. De in de studie gebruikte primersequenties staan vermeld in Tabel 1.
Western blot
Totaaleiwit werd geëxtraheerd uit cellen of PVN-weefsel met ijskoud RIPA-buffer met protease- en fosfataseremmers. Lysaten werden geklaard bij 12,000 × g gedurende 15 min bij 4 °C, en de eiwitconcentratie werd bepaald met een BCA-assay. In totaal werd 30 µg eiwit per lane geladen op een 8%–12% SDS-polyacrylamidegel, gekozen op basis van het molecuulgewicht van het doeleiwit, en overgebracht naar een 0,45 µm PVDF-membraan bij 300 mA gedurende 90 min op ijs. Membranen werden gedurende 1 u bij kamertemperatuur geblokkeerd in 5% runderserumalbumine voor fosfo-eiwitten of 5% vetvrije melk voor andere doelen. Primaire antilichamen werden overnacht geïncubeerd bij 4 °C in de verdunningen zoals gespecificeerd in de Tabel van Materialen, inclusief het totaal CREB-antilichaam. Membranen werden drie keer gedurende 10 min gewassen met TBST en geïncubeerd met het juiste met mierikswortelperoxidase geconjugeerde secundaire antilichaam (1:5,000) gedurende 1 u bij kamertemperatuur, gevolgd door aanvullende wasbeurten. Banden werden gedetecteerd via verbeterde chemiluminescentie met niet-verzadigde belichtingen. De bandendichtheid werd gekwantificeerd met ImageJ. Fosfo-eiwitten werden genormaliseerd ten opzichte van het overeenkomstige totaaleiwit, terwijl andere doeleiwitten werden genormaliseerd ten opzichte van GAPDH.
Immunofluorescentiekleuring
Coronale bevroren coupes (20 µm) door de PVN werden geprepareerd van ongeveer −1,3 tot −2,1 mm ten opzichte van bregma. Per rat werden drie anatomisch overeenkomstige coupes geselecteerd met intervallen van 120 µm. De coupes werden 20 min geëquilibreerd bij kamertemperatuur, driemaal gewassen met PBS, en gedurende 1 u geblokkeerd en gepermeabiliseerd met 0,3% Triton X-100 en 5% geiten serum. De coupes werden overnacht bij 4 °C geïncubeerd met Iba-1 of c-Fos primaire antilichamen, gewassen en gedurende 1 u bij kamertemperatuur in het donker geïncubeerd met het passende fluorescerende secundaire antilichaam. Kernen werden 10 min tegengekleurd met DAPI. Bilaterale beelden van de PVN werden vastgelegd bij een vergroting van 200× met een omgekeerde fluorescentiemicroscoop, waarbij identieke belichtings- en gain-instellingen werden gehanteerd binnen elke marker. Een vooraf gedefinieerde ImageJ-drempelwaarde werd toegepast op de gecodeerde beelden, waarna het Iba-1-positieve oppervlak of de c-Fos-positieve kernen werden gekwantificeerd. De metingen van de drie coupes werden gemiddeld om één waarde op dierniveau te verkrijgen.
Veiligheid en afvalverwerking
Methanol, ethanol, paraformaldehyde, DCFH-DA, elektroforesereagentia en dierlijke weefsels werden behandeld in overeenstemming met de institutionele procedures voor chemische en biologische veiligheid. Vluchtige oplosmiddelen en paraformaldehyde werden behandeld in een gecertificeerde chemische zuurkast, waarbij geschikte persoonlijke beschermingsmiddelen werden gedragen. Halogeenvrije organische oplosmiddelafval en formaldehydehoudend afval werden gescheiden, biologisch afval werd gedecontamineerd, en scherpe voorwerpen en dierlijke karkassen werden afgevoerd via goedgekeurde institutionele kanalen. Lokale afvalcategorieën en noodprocedures werden vóór gebruik bevestigd.
Statistische analyse
Gegevens werden gepresenteerd als gemiddelde ± standaarddeviatie en geanalyseerd met statistische en grafische software. De onafhankelijke cultuurpreparatie of het dier werd gebruikt als biologische experimentele eenheid, en technische wells, velden of herhaalde metingen werden binnen elke eenheid gemiddeld vóór de statistische inferentie. Distributionele aannames en variantiepatronen werden beoordeeld voorafgaand aan de parametrische analyses. Eindpunt-datasets met meerdere groepen werden geanalyseerd met behulp van een eenweg-variantieanalyse, gevolgd door de op multipliciteit aangepaste vergelijkingen van Tukey. De longitudinale systolische bloeddruk werd beschrijvend gepresenteerd als gemiddelde ± standaarddeviatie, en de bloeddrukresultaten op het eindpunt werden geanalyseerd met een eenweg-variantieanalyse met correctie van Tukey. Gecorrigeerde p waarden, gemiddelde verschillen en 95% betrouwbaarheidsintervallen werden gerapporteerd. Een tweezijdige p < 0,05 werd beschouwd als statistisch significant, en alle exclusies en ontbrekende waarden werden gerapporteerd.
Resultaten
Doelgericht HPLC-gekwantificeerd SJBE remt Ang II-geïnduceerde microgliale inflammatie
Ethanol-refluxextractie leverde SJBE-poeder op met een rendement van 25,5 ± 0,7% van het startmateriaal (Figuur 1A). Gerichte HPLC-analyse kwantificeerde rutin en quercetine op respectievelijk 276,1 mg/g ± 9,2 mg/g en 12,5 mg/g ± 0,9 mg/g (Figuur 1B), wat zorgde voor een kwantitatieve karakterisering van de markerstoffen in de SJBE-preparatie die gedurende de biologische experimenten is gebruikt.
SJBE vertoonde geen detecteerbaar effect op de levensvatbaarheid van BV-2-cellen bij concentraties tot 200 µg/mL, terwijl een significante afname in levensvatbaarheid werd waargenomen bij 400 µg/mL (Figuur 1C). Op basis van deze resultaten werd 100 µg/mL gekozen voor de daaropvolgende mechanistische experimenten. Ang II verhoogde de afgifte van TNF-α en IL-1β uit BV-2-cellen aanzienlijk, terwijl SJBE beide inflammatoire cytokinen reduceerde over het geteste niet-cytotoxische concentratiebereik (Figuur 1D,E), wat wijst op een concentratie-afhankelijk ontstekingsremmend effect onder stimulatie met Ang II.
SJBE is geassocieerd met hogere ACE2/MasR-markers en een lagere NF-κB-signalering en oxidatieve stress
Stimulatie met Ang II verminderde de expressie van ACE2 en MasR op zowel eiwit- als mRNA-niveau en ging gepaard met een verhoogde fosforylering van NF-κB p65. Behandeling met SJBE keerde deze veranderingen om, waarbij de expressie van ACE2 en MasR toenam terwijl de fosforylering van p65 afnam (Figuur 2A–E).
In overeenstemming met deze moleculaire veranderingen verlaagde SJBE de TNF-α-concentraties van 135 pg/mL ± 12 pg/mL naar 55 pg/mL ± 6 pg/mL en de IL-1β-concentraties van 102 pg/mL ± 10 pg/mL naar 42 pg/mL ± 5 pg/mL in Ang II-gestimuleerde cultuursupernatanten. Toevoeging van de ACE2-remmer MLN-4760 verminderde deze effecten aanzienlijk, waarbij TNF-α en IL-1β respectievelijk toenamen tot 125 pg/mL ± 11 pg/mL en 95 pg/mL ± 9 pg/mL. Behandeling met rutine reproduceerde een deel van de ontstekingsremmende respons die werd waargenomen bij het volledige extract (Figuur 2F).
SJBE verminderde ook aanzienlijk de intracellulaire DCFH-DA-fluorescentie na stimulatie met Ang II, wat wijst op een lagere intracellulaire accumulatie van reactieve zuurstofspecies. Deze vermindering werd afgezwakt door MLN-4760 (Figuur 2G,H). Samen geven deze bevindingen aan dat de ontstekingsremmende en antioxidatieve effecten van SJBE in Ang II-gestimuleerde BV-2-cellen gepaard gaan met herstel van ACE2/MasR-signalering en gevoelig zijn voor farmacologische inhibitie van ACE2.
SJBE beperkt de inflammatoire overdracht van microglia naar hypothalamische neuronen
Om te onderzoeken of de ontstekingsremmende effecten van SJBE de communicatie tussen microglia en neuronen beïnvloeden, werden BV-2 cellen en mHypoA-2/10 hypothalamische neuronen gekweekt in een non-contact Transwell-systeem. Ang II-stimulatie verhoogde de concentraties TNF-α en IL-1β in het co-kultuursysteem, terwijl SJBE TNF-α reduceerde van 150 ± 15 pg/mL naar 65 pg/mL ± 8 pg/mL en IL-1β van 110 pg/mL ± 12 pg/mL naar 48 pg/mL ± 6 pg/mL (Figuur 3A). Ang II verminderde ook de expressie van Ace2 en Mas1, die beide na behandeling met SJBE werden hersteld tot niveaus die benaderden die van de controlegroep (Figuur 3B).
Overeenkomstige veranderingen werden waargenomen in hypothalamische neuronen die waren gekweekt in de onderste kamer. Blootstelling aan de door Ang II-gestimuleerde co-cultuuromgeving verhoogde de expressie van c-Fos en COX-2 en veranderde de expressie van Avp en Oxtr, terwijl SJBE deze reacties dempte (Figuur 3C–G). Het beschermende patroon werd verzwakt door MLN-4760, wat de ACE2-activiteit verder koppelde aan de effecten die werden waargenomen in het co-cultuursysteem.
Deze bevindingen tonen aan dat SJBE het inflammatoire milieu onder stimulatie met Ang II onderdrukt en dat dit gepaard gaat met een verminderde activering van downstream hypothalamische neuronale responsen in het Transwell-model.
SJBE is geassocieerd met Ang-(1-7)-signalering en minder neuronale beschadiging onder gecombineerde stress van een hoog natriumgehalte/Ang II
Blootstelling aan Ang II verminderde de concentraties van Ang-(1-7) in het supernatant van de co-cultuur en verhoogde de neuronale phospho-CREB/CREB-ratio. Behandeling met SJBE verhoogde Ang-(1-7) en verminderde de CREB-fosforylering richting de controleniveaus (Figuur 4A–C), wat consistent is met het herstel van het ACE2/Ang-(1-7)/MasR-geassocieerde signaleringsprofiel dat in de voorafgaande experimenten werd waargenomen.
Onder gecombineerde stimulatie met 30 mmol/L NaCl en Ang II vertoonden hypothalamische neuronen een verhoogde Avp-expressie en een hoger aandeel TUNEL-positieve cellen. SJBE verminderde beide reacties significant (Figuur 4D–F), wat wijst op verminderde neuronale stress en beschadiging onder de gecombineerde belasting. Voor de TUNEL-analyse vertegenwoordigt elke waarde een onafhankelijk geprepareerde co-cultuur, waarbij drie microscopische velden binnen elk biologisch replica zijn gemiddeld voorafgaand aan de statistische analyse (n = 5 per groep).
SJBE verlaagt de staartmanchetbloeddruk en is geassocieerd met hogere PVN ACE2/Ang-(1-7)/MasR-markers bij L-NAME-behandelde ratten
Dagelijkse toediening van L-NAME leidde tot een progressieve stijging van de systolische bloeddruk tijdens de inductie van het model. Na het ontstaan van hypertensie verlaagde de behandeling met SJBE de wekelijkse bloeddruk, gemeten via de staartmanchet, gedurende de daaropvolgende interventieperiode van 6 weken, waarbij de meest uitgesproken respons werd waargenomen in de hoog-doseringsgroep (Figuur 5A).
Aan het eindpunt van de studie was de systolische bloeddruk 165 ± 8 mmHg in de L-NAME-modelgroep, vergeleken met 115 mmHg ± 5 mmHg bij de controle-ratten. Een hoge dosis SJBE verlaagde de systolische bloeddruk tot 130 mmHg ± 6 mmHg. De diastolische bloeddruk daalde van 110 mmHg ± 6 mmHg naar 85 mmHg ± 4 mmHg, terwijl de gemiddelde arteriële druk daalde van 128 mmHg ± 7 mmHg naar 100 mmHg ± 5 mmHg na behandeling met een hoge dosis SJBE (alle gecorrigeerde p < 0,0001 ten opzichte van de modelgroep; Figuur 5B). Deze bevindingen tonen een aanhoudende antihypertensieve respons op SJBE aan gedurende de interventieperiode.
Analyse van PVN-weefsel onthulde parallelle moleculaire veranderingen. Behandeling met L-NAME reduceerde de proteïne-expressie van ACE2 en MasR alsovolgens de concentraties van Ang-(1-7), terwijl SJBE alle drie de markers herstelde in een dosisafhankelijk patroon. In de hoge-dosisgroep nam de relatieve expressie van ACE2 toe van 0,40 ± 0,07 naar 1,50 ± 0,18-voudig, nam MasR toe van 0,45 ± 0,08 naar 1,35 ± 0,16-voudig, en nam Ang-(1-7) toe van 9 pg/mg ± 2 pg/mg naar 32 pg/mg ± 5 pg/mg proteïne vergeleken met de modelgroep (Figuur 5C–E). Bijgevolg ging het bloeddrukverlagende effect van SJBE gepaard met het herstel van het ACE2/Ang-(1-7)/MasR-geassocieerde moleculaire profiel binnen de PVN.
SJBE is geassocieerd met een lagere inflammatoire activatie van de PVN en lagere markers voor systemische sympathische output
L-NAME-geïnduceerde hypertensie ging gepaard met een duidelijke inflammatoire activatie binnen de PVN. De mRNA-niveaus van Tnf en Il1b waren verhoogd in de modelratten, terwijl een hoge dosis SJBE de expressie van Tnf reduceerde van 4,5 ± 0,5 naar 1,8 ± 0,2-voudig en de expressie van Il1b van 3,8 ± 0,4 naar 1,6 ± 0,18-voudig (Figuur 6A).
Immunofluorescentieanalyse toonde overeenkomstige cellulaire veranderingen aan. Iba-1-kleuring, indicatief voor microgliële activatie, was verhoogd in de PVN van L-NAME-behandelde ratten en nam af na toediening van SJBE. c-Fos-kleuring vertoonde een vergelijkbaar patroon, met een lagere neuronale activatie na SJBE-behandeling dan in de onbehandelde modelgroep (Figuur 6B–D).
Deze centrale ontstekingsveranderingen gingen gepaard met verbeteringen in circulerende ontstekings- en sympathische markers. De plasma-concentraties van TNF-α en IL-1β waren verhoogd bij de modelratten en werden aanzienlijk verlaagd na behandeling met SJBE. In de hoog-dosismengselgroep nam TNF-α af van 45 pg/mL ± 6 pg/mL naar 20 pg/mL ± 3 pg/mL en IL-1β van 35 pg/mL ± 5 pg/mL naar 15 pg/mL ± 3 pg/mL (Figuur 6E). Plasma-norepinefrine nam op soortgelijke wijze af van 400 pg/mL ± 45 pg/mL naar 180 pg/mL ± 25 pg/mL (Figuur 6F).
Collectief laten deze in vivo bevindingen zien dat behandeling met SJBE de bloeddruk verlaagt bij L-NAME-behandelde ratten, parallel aan het herstel van PVN ACE2/Ang-(1-7)/MasR-geassocieerde markers, vermindering van de inflammatoire activatie in de PVN en een afname van circulerende inflammatoire cytokinen en norepinefrine.
DATABESCHIKBAARHEID:
De numerieke brondata ten grondslag aan de figuren en de bijbehorende statistische resultaten zijn opgenomen in Aanvullend Bestand 1.
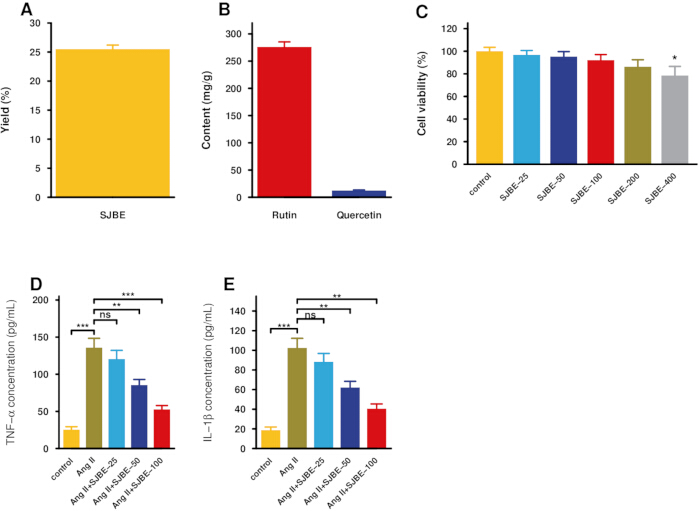
Figuur 1: Gericht HPLC-kwantificering en initiële BV-2 experimenten. (A) Extractieopbrengst. (B) Rutine- en quercetinegehaltes in SJBE gekwantificeerd via gerichte HPLC. (C) Viabiliteit van BV-2 na 24 u blootstelling aan SJBE. (D,E) TNF-α en IL-1β in Ang II-gestimuleerde BV-2 supernatanten. Gegevens zijn gemiddelde ± SD; n = 3 onafhankelijke experimenten voor de beschikbare kwantitatieve panelen. Eenweg-ANOVA met Tukey-gecorrigeerde vergelijkingen werd gebruikt. Afkorting: ns, niet significant; *p < 0.05, **p < 0.01, *** p < 0.001, **** p < 0.0001. Klik hier om een grotere versie van deze figuur te bekijken.
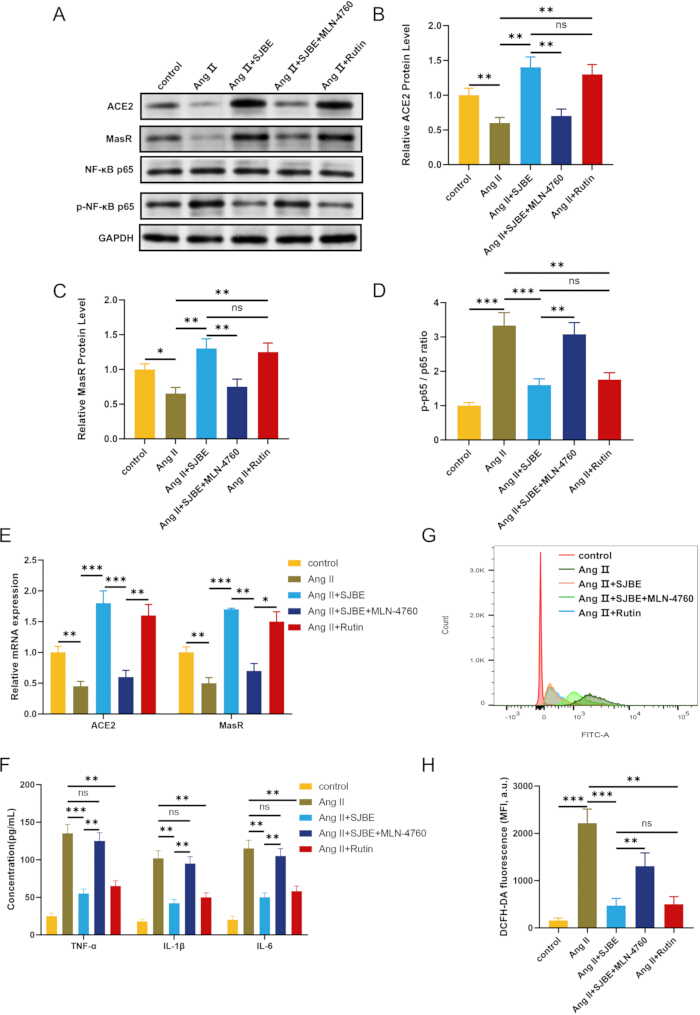
Figuur 2: SJBE is geassocieerd met hogere ACE2/MasR-markers en lagere NF-κB-signalering en oxidatieve stress in BV-2-cellen. (A–D) Immunoblots en kwantificatie van ACE2, MasR, fosfo-p65 en totaal p65. (E) Ace2- en Mas1-mRNA. (F) TNF-α, IL-1β en IL-6. (G,H) ROS flowcytometrie-output en fluorescentiekwantificatie. Gegevens zijn gemiddelde ± SD; n = 3 onafhankelijke experimenten. Er is gebruikgemaakt van eenweg-ANOVA met Tukey-gecorrigeerde vergelijkingen. ns, niet significant; *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. Klik hier om een grotere versie van deze figuur te bekijken.
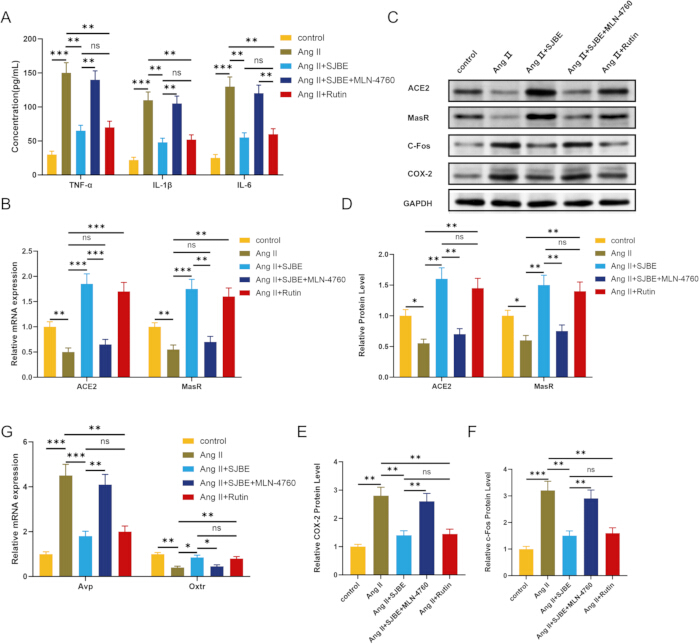
Figuur 3: SJBE beperkt inflammatoire signalering in een BV-2/mHypoA-2/10 oplosbare-factor co-cultuurmodel. (A) Cytokinen in co-cultuursupernatans. (B) Ace2- en Mas1-mRNA. (C–F) ACE2-, MasR-, c-Fos- en COX-2-immunoblots en kwantificering. (G) Avp- en Oxtr-expressie in neuronen van de onderste kamer. Gegevens zijn gemiddelde ± SD; n = 3 onafhankelijke experimenten. Eenweg-ANOVA met Tukey-gecorrigeerde vergelijkingen werd gebruikt. ns, niet significant; *p < 0,05, **p < 0,01, ***p <0,001, ****p < 0,0001. Klik hier om een grotere versie van deze figuur te bekijken.
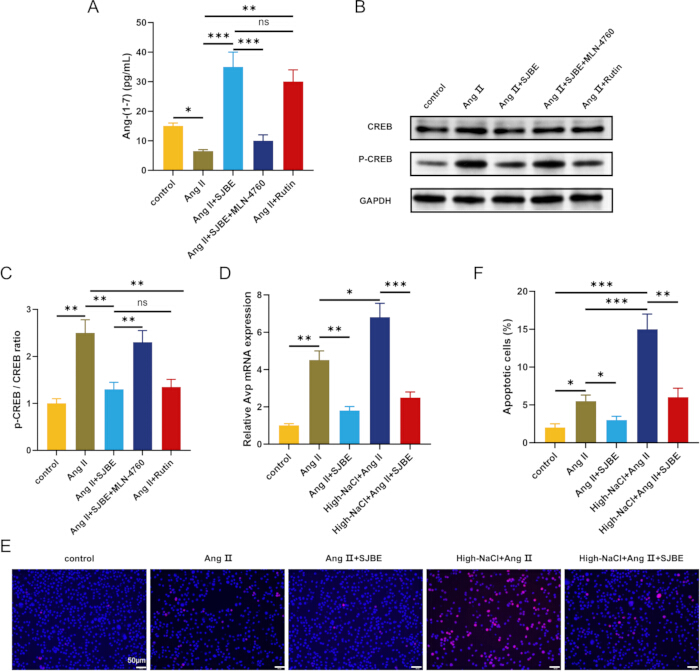
Figuur 4: SJBE is geassocieerd met Ang-(1-7)-signalering en minder stress-gerelateerde neuronale schade. (A) Ang-(1-7) in co-cultuursupernatans. (B,C) Fosfo-CREB en totaal CREB in neuronen van de onderste kamer. (D) Avp onder de gecombineerde NaCl/Ang II-stressconditie. (E,F) Representatieve TUNEL-beelden en kwantificatie; schaalbalk, 50 µm. Gegevens zijn gemiddelde ± SD; n = 3 onafhankelijke experimenten voor panelen A, C en D; n = 5 onafhankelijke co-cultuurpreparaten voor paneel F, waarbij drie velden per preparaat zijn gemiddeld. Eénweg ANOVA met Tukey-gecorrigeerde vergelijkingen werd gebruikt. ns, niet significant; *p < 0,05, **p < 0,01, ***p < 0,001, ****p < 0,0001. Klik hier om een grotere versie van deze figuur te bekijken.
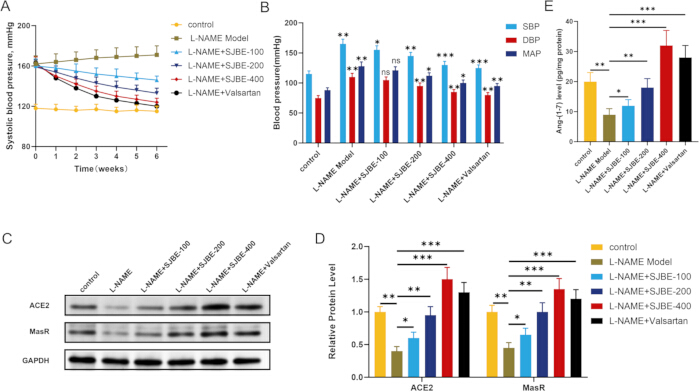
Figuur 5: SJBE verlaagt de staartmanchetbloeddruk en is geassocieerd met hogere PVN ACE2/Ang-(1-7)/MasR-markers bij L-NAME-behandelde ratten. (A) Longitudinale systolische bloeddruk. (B) Eindpunt systolische, diastolische en gemiddelde arteriële druk. (C,D) ACE2- en MasR-immunoblots en kwantificering in PVN-weefsel. (E) Ang-(1-7) in PVN-homogenaten. Gegevens zijn gemiddelde ± SD; n = 6 ratten/groep. Longitudinale SBP wordt beschrijvend weergegeven; voor eindpuntresultaten werd eenweg-ANOVA gebruikt met Tukey-gecorrigeerde vergelijkingen. ns, niet significant; *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. Klik hier om een grotere versie van deze figuur te bekijken.
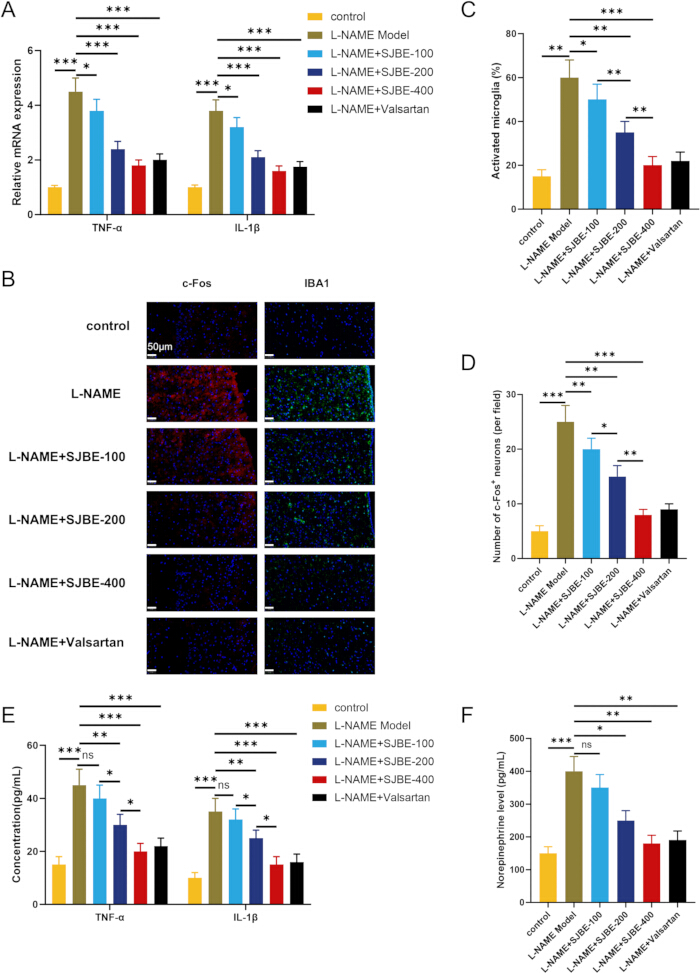
Figuur 6: SJBE is geassocieerd met lagere markers voor inflammatoire activering van de PVN en systemische sympathische output bij L-NAME-behandelde ratten. (A) Tnf- en Il1b-mRNA in PVN-weefsel. (B–D) Iba-1- en c-Fos-immunofluorescentie en kwantificering; schaalbalken, 50 µm. (E) Plasma TNF-α en IL-1β. (F) Plasmanorepinefrine. Gegevens zijn gemiddelde ± SD; n = 6 ratten/groep. Eenweg-ANOVA met Tukey-gecorrigeerde vergelijkingen werd gebruikt. *p < 0.05, **p < 0.01, ***p < 0.001, ****p < 0.0001. Klik hier om een grotere versie van deze figuur te bekijken.
| Gen | Forward primer (5'-3') | Reverse primer (5'-3') |
| Gapdh | CACCCACTCCTCCACCTTTGAC | GTCCACCACCCTGTTGCTGTAG |
| Tnf | CCTGCTGCACTTTGGAGTGA | GCTTGAGGGTTTGCTACAACA |
| Il1b | CAGTGAGGAGAATGACCTGTTC | CGAGATGCTGCTGTGAGATT |
| Ace2 | TCCATTGGTCTTCTGCCATCCG | AGACCATCCACCTCCACTTCTC |
| Mas1 | TCCACCATCAATAGCAGCG | AAGCCACCCACATTCAGGC |
| Avp | TCGCCATGATGCTCAACACTACGC | ACACTGTCTCAGCTCCATGTCGGATG |
| Oxtr | GTGTCGAGTTGGACCTCGGG | CCAGGAACAGAATGAGGCACAG |
Tabel 1: Primersequenties gebruikt in de studie.
Aanvullend bestand 1: De numerieke brondata ten grondslag aan de figuren en de bijbehorende statistische resultaten. Klik hier om dit bestand te downloaden.
Discussie
Deze studie associeert gericht via HPLC-gekwantificeerd S. japonicum bud-extract met een lagere inflammatoire signalering in microgliële en oplosbare-factor co-cultuurmodellen en met een lagere staartmanchet-bloeddruk bij L-NAME-behandelde ratten. In de verschillende experimentele systemen viel de behandeling met SJBE samen met hogere ACE2/Ang-(1-7)/MasR-markers, een lagere NF-κB-activatie en oxidatieve stress, en lagere inflammatoire-activatiemarkers in de PVN. Deze convergente observaties ondersteunen een neuro-immuunhypothese, maar bewijzen niet dat het centrale pad het antihypertensieve effect medieert.
De resultaten zijn consistent met rapporten dat bestanddelen uit de bloem van S. japonicum en rutina inflammatoire signalering en neuro-inflammatie verminderen8,9,22, en met bewijs dat quercetine de cardiovasculaire inflammatoire tonus en microgliale redox-signalering moduleert12,13. De huidige studie breidt deze observaties uit naar hypothalamische neuro-immuunmodellen met behulp van een volledig botanisch extract. Omdat MLN-4760 de beschermende respons uitsluitend in vitro verzwakte, wordt ACE2 bij voorkeur geïnterpreteerd als een functionele bijdrager aan de cellulaire anti-inflammatoire respons, in plaats van als de vastgestelde mediator van het in vivo bloeddrukeffect.
De bevindingen in de PVN plaatsen de cellulaire observaties binnen een regio voor cardiovasculaire controle. Eerdere studies tonen aan dat microglia en inflammatoire cytokinen bijdragen aan neurogene hypertensie en sympathische excitatie23,24. Ang-(1-7)-signalering binnen de PVN kan de sympathische uitstroom reguleren, terwijl Ang II AT1/TLR4-afhankelijke redoxstress in microglia kan veroorzaken20,21. Bijgevolg zijn de reducties in Iba-1, c-Fos, inflammatoire cytokinen en plasmanorepinefrine na SJBE-behandeling consistent met een lagere inflammatoire activatie van de PVN, maar de gegevens stellen niet vast of deze veranderingen de daling van de bloeddruk hebben veroorzaakt of volgden op een systemische verbetering.
De Ang II- en L-NAME-modellen bieden complementaire stresscontexten in plaats van identieke ziekte mechanismen. Ang II-stimulatie induceert renine-angiotensine-gestuurde microgliale inflammatie, terwijl L-NAME hypertensie door stikstofoxidegebrek modelleert, gepaard gaand met vasculaire dysfunctie en oxidatieve stress25,26. Andere modellen impliceren ook PVN microgliale activatie bij de sympathische regulatie14,27, maar de huidige L-NAME-studie is niet specifiek voor PVN-gestuurde neurogene hypertensie. De co-cultuurconditie met een hoog natriumgehalte was een in vitro neuronale stressuitdaging zonder iso-osmotische controle en moet niet worden geïnterpreteerd als een in vivo zout-hypertensiemodel.
Voor een reproduceerbare toepassing zijn de meest kritische stappen de documentatie van de botanische bron, consistente extractie en opslag, gestandaardiseerde celdichtheid en timing van de behandeling, correcte toewijzing van de Transwell-compartimenten, habituatie en opwarming van de staartmanchet, nauwkeurige bemonstering van de PVN en geblindeerde kwantificering van het eindpunt. Een variabele extractieopbrengst zou aanleiding moeten geven tot controles van het vochtgehalte van het materiaal, de oplosmiddelverhouding, de refluxcondities, de filtratie en de lyofilisatie; verschuivingen in de HPLC-retentietijd zouden aanleiding moeten geven tot controles van de standaardbereiding, de mobiele fase, de stroomsnelheid, de temperatuur, de kolomequilibratie en de systeemsuitaibiliteit. Inconsistente resultaten bij co-cultuur of staartmanchetmetingen moeten worden aangepakt door de integriteit van de insert en de plaatsing van de behandeling te controleren, of door de gestandaardiseerde habituatie te herhalen, in plaats van door selectief metingen uit te sluiten. Chromatografische fingerprinting of LC-MS/MS, primaire of cel-selectieve co-cultuuroperaties, telemetrie, farmacokinetiek in hersenen/plasma en centrale ACE2/MasR loss-of-function experimenten zijn geschikte alternatieven voor vragen die buiten dit protocol vallen. Opkomend interdisciplinair werk over neuron–micro-omgevingsremodellering en de integratie van imaging/kunstmatige intelligentie illustreert bredere methodologische richtingen voor het onderzoeken van complexe biologische systemen28,29.
Verschillende beperkingen bepalen het toepassingsbereik. MLN-4760 leverde enkel in vitro functioneel bewijs; er werd geen in vivo ACE2/MasR-blokkade of meting van de bloedplasma-, hersen- of PVN-blootstelling uitgevoerd. De concentratie van 100 µg/mL is daarom een niet-cytotoxische in vitro werconcentratie en geen in vivo-equivalente blootstelling. Het Transwell-ontwerp kan geen microglia-specifieke werking bewijzen, en de kleine, niet-prospectief bekrachtigde diercohort beperkt de precisie. Staartmanchetmetingen zijn intermitterend en gevoelig voor stress door fixatie. Ten slotte stelt de gerichte kwantificering van rutin/quercetine geen chemische vingerafdruk, volledige analytische validatie, toeschrijving van bestanddelen of consistentie tussen onafhankelijke batches vast. Binnen deze kaders ondersteunt het protocol de generatie van hypothesen met betrekking tot SJBE, neuro-inflammatoire signalering en bloeddrukregulatie, in plaats van een definitieve causale of translationele bewering.
Openbaarmakingen
De auteurs verklaren dat er geen concurrerende belangen zijn.
Dankbetuigingen
De auteurs erkennen de institutionele en technische ondersteuning van de deelnemende laboratoria.
Financiering:
Dit werk werd ondersteund door de National Natural Science Foundation of China (Nr. 82600861); het Youth Project van het Fundamental Research Program of Shanxi Province (Nrs. 202203021212491, 202303021222205); het General Project van het Fundamental Research Program of Shanxi Province (Nr. 202203021221210); en het Doctoral Research Startup Project van Shanxi Datong University (Nr. 2018-B-36).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0,4 µm Transwell-inserts | Corning Incorporated | 3413 | Polycarbonaatmembraan-insert voor 24-wells voor non-contact co-cultuur van BV-2/mHypoA-2/10 |
| ACE2-antilichaam | Cell Signaling Technology | 92485; RRID: AB_3741093 | ACE2 (E5O6J) konijn mAb; WB 1:1.000; IHC/IF 1:100–1:200 |
| Alexa Fluor 488 anti-konijn IgG | Cell Signaling Technology | 4412; RRID: AB_1904025 | Secundair antilichaam voor immunofluorescentie; 1:500 |
| Alexa Fluor 594 anti-konijn IgG | Cell Signaling Technology | 8889; RRID: AB_2716249 | Secundair antilichaam voor immunofluorescentie; 1:500 |
| Angiotensine II | Sigma-Aldrich | A9525 | Synthetisch Ang II-peptide; microgliastimulatie |
| Angiotensine-(1-7) assaykit | Cloud-Clone Corp. | CES085Mi | Kwantificering van Ang-(1-7) |
| BCA-eiwitassaykit | Beyotime Biotechnology | P0012 | Ewitkwantificering |
| BV-2-cellen | Procell Life Science & Technology Co., Ltd. | CL-0493; RRID: CVCL_0182 | Muis microgliacellijn; passages 3–20 |
| C18 HPLC-kolom | Shimadzu Corporation | Shim-pack GIST C18; P/N 227-30017-08 | 250 × 4,6 mm, 5 µm; methanol–water (65:35, v/v), 1,0 mL/min, 35 °C |
| CCK-8-reagens | Beyotime Biotechnology | C0038 | Cellviabiliteitsassay |
| c-Fos-antilichaam | Cell Signaling Technology | 2250; RRID: AB_2247211 | c-Fos (9F6) konijn mAb; WB 1:1.000; IF 1:200 |
| COX-2-antilichaam | Cell Signaling Technology | 12282; RRID: AB_2571729 | COX-2 (D5H5) konijn mAb; WB 1:1.000; IHC/IF 1:200 |
| DCFH-DA-probe | Beyotime Biotechnology | S0033S | ROS-detectie via flowcytometrie |
| DMEM, hoge glucose | Gibco/Thermo Fisher Scientific | 11965092 | Celcultuurmedium |
| Evo M-MLV Reverse Transcription Premix Kit | Accurate Biotechnology | AG11706 | cDNA-synthese voor qPCR |
| Foetaal runderserum | Gibco/Thermo Fisher Scientific | 10099141 | Supplement voor celcultuur |
| Flowcytometer | BD Biosciences | BD Accuri C6 Plus | ROS-fluorescentieacquisitie |
| Fluorescentiemicroscoop | Olympus/Evident Scientific | IX73 | Inverteerde fluorescentiemicroscoop voor TUNEL- en PVN-beeldvorming |
| GAPDH-antilichaam | Cell Signaling Technology | 5174; RRID: AB_10622025 | GAPDH (D16H11) konijn mAb; WB 1:1.000–1:5.000 |
| Geiten-serum | Beyotime Biotechnology | C0265 | Blokkeer-reagens voor immunofluorescentie |
| HPLC-systeem | Shimadzu Corporation, Kyoto, Japan | Prominence LC-20A | Targeted kwaliteitscontrole-assay voor rutina/quercetine |
| HRP-gekoppeld anti-muis IgG | Cell Signaling Technology | 7076; RRID: AB_330924 | Secundair antilichaam voor Western blot; 1:3.000–1:5.000 |
| HRP-gekoppeld anti-konijn IgG | Cell Signaling Technology | 7074; RRID: AB_2099233 | Secundair antilichaam voor Western blot; 1:3.000–1:5.000 |
| Iba-1/AIF-1-antilichaam | Cell Signaling Technology | 17198; RRID: AB_2820254 | Iba-1/AIF-1 (E4O4W) konijn mAb; WB 1:1.000; IHC/IF 1:200 |
| IL-6 ELISA-kit | Beyotime Biotechnology | PY2782 | Muis IL-6-kwantificering |
| L-NAME | Beyotime Biotechnology | S0006 | NOS-remmer voor hypertensie door stikstofoxidegebrek |
| Mannetjes Wistar-ratten | Beijing HFK Bioscience Co., Ltd. | Wistar; SCXK (Jing) 2019-0008 | Specifieke-pathogeen-vrije mannetjes, 6–8 weken, 180–220 g |
| MasR-antilichaam | Alomone Labs | AAR-013; RRID: AB_2039972 | Anti-Mas-receptorantilichaam; WB 1:200; IHC/IF 1:100 |
| mHypoA-2/10-cellen | Cedarlane Laboratories Ltd. | CLU176; RRID: CVCL_D384 | Muis hypothalamische neuronale cellijn; passages 3–20 |
| Microplate-reader | Thermo Scientific | Multiskan FC; Cat. No. 51119000 | Absorbantiemetingen voor CCK-8 en ELISA |
| MLN-4760 | Beyotime Biotechnology | SF1197 | ACE2-remmer; 10 µmol/L in cel-experimenten |
| Muis IL-1β ELISA-kit | Invitrogen/Thermo Fisher Scientific | 88-7013A-88 | Muis IL-1β-kwantificering |
| Muis TNF-α ELISA-kit | Beyotime Biotechnology | PT512 | Muis TNF-α-kwantificering |
| NF-κB p65-antilichaam | Cell Signaling Technology | 8242; RRID: AB_10859369 | NF-κB p65 (D14E12) XP konijn mAb; WB 1:1.000 |
| Niet-invasief tail-cuff-systeem | Visitech Systems | BP-2000-R-4 | Systeem voor bloeddrukmeting via de staart en verwarming bij ratten |
| Norepinefrine-assaykit | Cloud-Clone Corp. | HEA907Ge | Norepinefrine-kwantificering |
| p-CREB-antilichaam | Cell Signaling Technology | 9198; RRID: AB_2561044 | Phospho-CREB (Ser133) (87G3) konijn mAb; WB 1:1.000 |
| Penicilline–streptomycine | Gibco/Thermo Fisher Scientific | 15140122 | Antibioticasupplement voor celcultuur |
| Fotodiodearray-detector | Shimadzu Corporation | SPD-M20A | HPLC UV–visible/PDA-detectie bij 360 nm |
| p-NF-κB p65-antilichaam | Cell Signaling Technology | 3031; RRID: AB_330559 | Phospho-NF-κB p65 (Ser536) antilichaam; WB 1:1.000 |
| PVDF-membraan | Beyotime Biotechnology | FFP77 | 0,45 µm Western blot-membraan |
| Quercetine-standaard | Beyotime Biotechnology | SM2147 | Quercetine-referentiestandaard; 98% zuiverheid via HPLC |
| Rat IL-1β ELISA-kit | Elabscience Biotechnology Inc. | E-HSEL-R0002 | Rat IL-1β-kwantificering |
| Rat TNF-α ELISA-kit | Elabscience Biotechnology Inc. | E-HSEL-R0001 | Rat TNF-α-kwantificering |
| Real-time PCR-systeem | Bio-Rad Laboratories, Inc. | CFX96 Touch; Cat. No. 1855195 | Real-time qPCR-amplificatie en smeltcurve-analyse |
| RIPA-lysisbuffer | Beyotime Biotechnology | P0013B | Ewitextractie |
| Rutina-standaard | Beyotime Biotechnology | SM2159 | Rutina-referentiestandaard; 98% zuiverheid via HPLC |
| Sophorae Flos referentiemateriaal | National Institutes for Food and Drug Control (NIFDC), Beijing, China | 121270; Batch No. 121270-201403 | Gecertificeerd botanisch referentiemateriaal voor authenticatie van S. japonicum-bloemknoppen |
| Styphnolobium japonicum-bloemknoppen | Botanisch studiemateriaal | Niet van toepassing | Gedroogde, ongeopende bloemknoppen geauthenticeerd aan de hand van NIFDC Sophorae Flos-referentiemateriaal |
| Totaal CREB-antilichaam | Proteintech Group, Inc. | 12208-1-AP; RRID: AB_2245417 | Totaal CREB konijn polyclonaal antilichaam voor normalisatie van phospho-CREB |
| TRIzol-reagens | Invitrogen/Thermo Fisher Scientific | 15596026 | RNA-isolatie |
| TUNEL-apoptosedetectiekit | Beyotime Biotechnology | C1086 | Detectie van neuronale apoptose |
| Valsartan | Sigma-Aldrich | SML0142 | AT1-receptorantagonist; positieve antihypertensieve controle |
Referenties
- He X, et al. Local and traditional uses, phytochemistry, and pharmacology of Sophora japonica L.: a review. J Ethnopharmacol. 2016;187:160-182.
- Madden E, McLachlan C, Oketch-Rabah H, Calderon AI. United States Pharmacopeia comprehensive safety review of Styphnolobium japonicum flower and flower bud. Phytother Res. 2022;36(5):2061-2071.
- Shi W, et al. Bioactive flavonoids from Flos Sophorae. J Nat Med. 2017;71(3):513-22.
- Paniwnyk L, Beaufoy E, Lorimer JP, Mason TJ. The extraction of rutin from flower buds of Sophora japonica. Ultrason Sonochem. 2001;8(3):299-301.
- Xie Z, et al. Extraction and isolation of flavonoid glycosides from Flos Sophorae Immaturus using ultrasonic-assisted extraction followed by high-speed countercurrent chromatography. J Sep Sci. 2014;37(8):957-965.
- Wang G, et al. Efficient extraction of flavonoids from Flos Sophorae Immaturus by tailored and sustainable deep eutectic solvent as green extraction media. J Pharm Biomed Anal. 2019;170:285-294.
- Le NT, Nguyen TPD, Ho DV, Phung HT, Nguyen HT. A green method to extract rutin from Sophora japonica L. MethodsX. 2023;11:102479.
- Liu Y, et al. Sophora japonica flowers and their main phytochemical, rutin, regulate chemically induced murine colitis in association with targeting the NF-kappaB signaling pathway and gut microbiota. Food Chem. 2022;393:133395.
- Hao G, et al. Rutin inhibits neuroinflammation and provides neuroprotection in an experimental rat model of subarachnoid hemorrhage, possibly through suppressing the RAGE-NF-kappaB inflammatory signaling pathway. Neurochem Res. 2016;41(6):1496-1504.
- Dabeek WM, Marra MV. Dietary quercetin and kaempferol: bioavailability and potential cardiovascular-related bioactivity in humans. Nutrients. 2019;11(10):2288.
- Patel RV, et al. Therapeutic potential of quercetin as a cardiovascular agent. Eur J Med Chem. 2018;155:889-904.
- Han X, et al. Quercetin hinders microglial activation to alleviate neurotoxicity via the interplay between NLRP3 inflammasome and mitophagy. Redox Biol. 2021;44:102010.
- Le K, et al. Quercetin alleviates neonatal hypoxic-ischemic brain injury by inhibiting microglia-derived oxidative stress and TLR4-mediated inflammation. Inflamm Res. 2020;69(12):1201-1213.
- Mi Y, Wu Q, Yuan W, Chen F, Du D. Role of microglia M1/M2 polarisation in the paraventricular nucleus: new insight into the development of stress-induced hypertension in rats. Auton Neurosci. 2018;213:71-80.
- Wei B, et al. Microglia in the hypothalamic paraventricular nucleus sense hemodynamic disturbance and promote sympathetic excitation in hypertension. Immunity. 2024;57(9):2030-42.e8.
- Wang M, et al. Microglia-mediated neuroinflammation: a potential target for the treatment of cardiovascular diseases. J Inflamm Res. 2022;15:3083-3094.
- Xu P, Sriramula S, Lazartigues E. ACE2/ANG-(1-7)/Mas pathway in the brain: the axis of good. Am J Physiol Regul Integr Comp Physiol. 2011;300(4):R804-817.
- Bader M. ACE2, angiotensin-(1-7), and Mas: the other side of the coin. Pflugers Arch. 2013;465(1):79-85.
- Sriramula S, Cardinale JP, Lazartigues E, Francis J. ACE2 overexpression in the paraventricular nucleus attenuates angiotensin II-induced hypertension. Cardiovasc Res. 2011;92(3):401-408.
- Silva AQ, Santos RA, Fontes MA. Blockade of endogenous angiotensin-(1-7) in the hypothalamic paraventricular nucleus reduces renal sympathetic tone. Hypertension. 2005;46(2):341-348.
- Biancardi VC, Stranahan AM, Krause EG, de Kloet AD, Stern JE. Cross talk between AT1 receptors and Toll-like receptor 4 in microglia contributes to angiotensin II-derived ROS production in the hypothalamic paraventricular nucleus. Am J Physiol Heart Circ Physiol. 2016;310(3):H404-115.
- Sun XY, et al. Rutin prevents tau pathology and neuroinflammation in a mouse model of Alzheimer’s disease. J Neuroinflammation. 2021;18(1):131.
- Shi P, et al. Brain microglial cytokines in neurogenic hypertension. Hypertension. 2010;56(2):297-303.
- Shen XZ, et al. Microglia participate in neurogenic regulation of hypertension. Hypertension. 2015;66(2):309-316.
- Simko F, et al. Effect of melatonin on the renin-angiotensin-aldosterone system in L-NAME-induced hypertension. Molecules. 2018;23(2):265.
- Selamoglu Talas Z. Propolis reduces oxidative stress in L-NAME-induced hypertension rats. Cell Biochem Funct. 2014;32(2):150-154.
- Moreira JD, et al. Inhibition of microglial activation in rats attenuates paraventricular nucleus inflammation in Gαi2 protein-dependent, salt-sensitive hypertension. Exp Physiol. 2019;104(12):1892-910.
- Wu Y, Sun R, Ren S, Zengin G, Li M. Neuronal reshaping of the tumor microenvironment in tumorigenesis and metastasis: bench to clinic. Medicine Advances. 2025;3(4):364-371.
- Xu J et al. Advancements in imaging technologies and AI integration for neurodegenerative disease management: a narrative review. Mol Imaging. 2025;24:15353508251393056.