Dit protocol beschrijft een reproduceerbare methode voor het genereren van zeer levensvatbare enkelcel-suspensies uit weefsels van de muizenmelkklier en melkkliertumoren, waarbij celoppervlakte-epitopen behouden blijven voor daaropvolgende analyses, waaronder flowcytometrie en single-cell RNA-sequencing.
Methodenartikel
Dissociatie van muisborstklier- en tumorweefsels voor het creëren van zeer levensvatbare enkelcel-suspensies
In dit artikel
Samenvatting
Samenvatting
De dissociatie van weefsel tot enkelcel-suspensies voor analyse helpt bij het begrijpen van wat er op cellulair niveau gebeurt in de tumoromgeving. Een langdurige uitdaging in Het verkrijgen en benutten van primaire cellen houdt in dat er hoogwaardige celsuspensies worden geproduceerd die de celkenmerken behouden voor verdere verwerking, waaronder single-cell RNA-sequencing (scRNA-Seq) of immunofenotypering via flowcytometrie. Gewoonlijk worden weefsels gedissocieerd met een combinatie van mechanische disruptie, enzymatische digestie en filtratie, waarbij verschillende factoren in elke stap variabiliteit in het uiteindelijke product introduceren. Daarom moeten optimalisatiestappen worden ondernomen om een methode te identificeren die het beste werkt voor elk specifiek weefseltype. Zo is weefsel van het mammavetkussen rijk aan adipocyten, waardoor het uitdagender is om een schone celsuspensie te verkrijgen en levensvatbare cellen succesvol te behouden. Als gevolg hiervan is het genereren van vergelijkbare celsuspensies uit mammavetkussenweefsel en epithelioïde tumoren een uitdaging. Dit protocol beschrijft een reproduceerbare, kosteneffectieve methode voor het genereren van zeer levensvatbare single-cell suspensies uit muis-mammaklier- en tumorweefsels die celoppervlak-epitopen behouden voor verdere analyse. Deze procedure is gebruikt voor het produceren van hoogwaardige scRNA-Seq-libraries en voor het uitvoeren van immunofenotypering met behulp van multiparametrische flowcytometrie.
Inleiding
Weefseldissociatie maakt het mogelijk om enkelcel-suspensies te verkrijgen en celtypen binnen weefsels te karakteriseren. Dit is bijzonder belangrijk bij het analyseren van de respons op immunotherapie, aangezien infiltrerende immuuncellen kunnen helpen het onderliggende mechanisme van weefselspecifieke immunologische responsen te verhelderen. Vaccinatie met deoxyribonucleazinezuur (DNA) dat het HER2/neu-oncogen codeert, leidt tot verhoogde bescherming tegen spontane HER2/neu-gestuurde mamma-tumoren in muismodellen1. Daarnaast is aangetoond dat DNA-vaccinatie een systemische respons induceert die wordt gekenmerkt door antilichaamproductie en interferon-γ (IFN-γ)-secreterende T-cellen1,2,3. Om deze reden hebben wij ons gericht op de ontwikkeling van een protocol om mamma-tumoren en vetrijke weefsels van de melkklier te dissociëren om de enumeratie van lokale immuniteit mogelijk te maken. De dissociatie van weefsel tot enkelcellen vereist enzymatische, mechanische of zowel enzymatische als mechanische methoden. Een uitdaging bij enzymatische dissociatie is dat deze methoden blootstelling aan enzymen gedurende een langere periode vereisen, vaak overnacht4. Overmatige blootstelling leidt tot degradatie van individuele cellen en oppervlaktemarkers, met de meest schadelijke effecten op immuuncellen5,6. Mechanische digestie kan een goede optie zijn voor het vrijmaken van immuuncellen zoals lymfocyten en macrofagen, hoewel het het stroma niet effectief afbreekt om een representatieve steekproef van epitheel- en stromacellen te verkrijgen. Onlangs is microfluidica voor weefseldissociatie onderzocht en voor het eerst ingezet om cellulaire aggregaten in oplossing op te breken7. Eén groep implementeerde een microfluidische benadering om fijngehakt weefsel verder af te breken met behulp van schuifkrachten in een apparaat8. Na 60 min geoptimaliseerde dissociatie leverde deze methode een 2-voudige toename van epitheelcellen en een 4-voudige toename van endotheelcellen op in vergelijking met een traditioneel enzymatisch digestieprotocol in mamma-weefsel. Er ontstonden echter uitdagingen bij het meten van de opbrengst van hepatocyten in een levermonster, waarbij de opbrengst in de loop van de tijd afnam, waarschijnlijk vanwege de grootte en fragiliteit van de hepatocyten. Daarom is het van het grootste belang om een middenweg te vinden die een schone, representatieve steekproef van meerdere celtypen oplevert terwijl de celintegriteit en oppervlakte-epitopen behouden blijven.
Enzymen die worden gebruikt in digestiemengsels bevatten doorgaans een combinatie van algemene collagenases9,10, trypsine (A Guide to Solid Tissue Dissociation)4,10,11, hyaluronidase9,10,11 of dispase4,9,10 en vereisen variërende hoeveelheden tijd voor een effectieve digestie. Het hier beschreven protocol maakt gebruik van twee specifieke typen collagenase, collagenase type II en collagenase D, als de primaire enzymen voor digestie, waarbij ethylenediaminetetraacetic acid (EDTA) in een secundaire rol wordt gebruikt om cel-celverbindingen via chelatie verder te verzwakken. Collagenase type II is een primair dissociatie-enzym geproduceerd door Clostridium histolyticum en helpt bij de digestie van kleine collageenfragmenten in de extracellulaire matrix. Collagenase D wordt ook geproduceerd door C. histolyticum en is uitgebreid gebruikt om verschillende weefsels te dissociëren, zoals long-, hart-, spier-, bot-, neurale en endotheliale weefsels. Deze collagenase helpt bij het behoud van de functionaliteit en integriteit van celoppervlakte-eiwitten, een belangrijke factor voor downstream immunofenotypering via flowcytometrie. Naast collagenase worden weefsels gedigesteerd in de aanwezigheid van deoxyribonuclease I (DNase I), dat vrij DNA afbreekt en dit daarmee verwijdert uit de resulterende celsuspensie.
Een andere uitdaging die specifiek is voor de dissociatie van melkklieren is de aanwezigheid van adipocyten binnen het monster. Naarmate een muis ouder wordt, accumuleert het vetkussen van de melkklier een aanzienlijk aantal adipocyten. Deze cellen zijn fragieler en gevoeliger voor ruptuur tijdens verdere verwerking, waardoor RNA en intracellulair debris in de celsuspensie kunnen vrijkomen. Dit verhoogt de hoeveelheid omgevings-RNA, wat de preparatie van de scRNA-Seq-library kan verstoren en de monsterkwaliteit kan verminderen. Extracellulair DNA kan leiden tot celaggregaten; daarom moeten alle overgebleven adipocyten na de initiële enzymatische dissociatie worden verwijderd om de integriteit van het monster te behouden. Gelukkig kan het drijfvermogen van adipocyten worden benut om de scheiding van de overige cellen tijdens centrifugatie te vergemakkelijken. Door gebruik te maken van een centrifugatieprotocol blijven de adipocyten aan het oppervlak van het supernatant. Hierdoor kunnen de cellen samen met het supernatant worden afgevoerd, terwijl wordt voorkomen dat ze worden opgenomen in de primaire celpellet. Hoewel niet verplicht, vermindert de inclusie van een geleidelijke vertraging de Coriolis-krachten in de buis, wat helpt om de adipocyten in een aparte laag aan de bovenzijde te houden, in het bijzonder bij melkkliertissue dat bijzonder rijk is aan adipocyten of wanneer de verwijdering van adipocyten het doel van de studie is12,13.
Met deze weefselspecifieke overwegingen in gedachten, hebben wij getracht een protocol vast te stellen dat kosteneffectief is, geen gespecialiseerde apparatuur vereist en een representatief celmonster van het ouderweefsel oplevert met een consistent hoge kwaliteit en reproduceerbaarheid.
Protocol
Alle procedures in dit protocol werden uitgevoerd in overeenstemming met het beleid van de US Public Health Service voor het gebruik van laboratoriumdieren en met goedkeuring van de Institutional Animal Care and Use Committee van Michigan State University.
1. Genereren van een enkelcel-suspensie uit muis-tumorgeweefsel en melkklierweefsel:
Weefseldigestie
- Voer alle overtollige of ongebruikte muisweefsels af als biologisch afval. Plaats plastics die besmet zijn met muisweefsels of -cellen in biologisch afval voor verwijdering. Verzamel celbevattende oplossingen in een container voor biologisch vloeibaar afval en behandel deze met 10% bleekmiddel vóór verwijdering.
- Zorg dat de verse weefseldigestie-cocktail onmiddellijk vóór de weefseldigestie wordt bereid. Elk monster vereist 10 mL digestie-cocktail (10 mL Roswell Park Memorial Institute (RPMI), 60 U DNase I, 25 mg Collagenase D, 50 mg Collagenase type II). Bewaar bij kamertemperatuur (RT) tot gebruik.
- Euthanaseer de muizen via cervicale dislocatie, met bilaterale pneumothorax als secundaire euthanasiemethode, met of zonder exsanguinatie.
- Plaats de muis in rugligging, met de poten naar buiten gestrekt en vastgepind.
- Spray de muis volledig in met 70% ethanol om monstercontaminatie door losse vacht te voorkomen.
- Maak één incisie langs de middellijn van de muis van het inguinale vetkussentje tot aan de nek, waarbij u voorzichtig bent om het peritoneum niet te doorprikken, gevolgd door een incisie langs elk been om een omgekeerde "Y"-vormige incisie te vormen.
- Spreid de huid open met behulp van botte dissectietechnieken om de huid van het onderliggende peritoneum te scheiden, en pin de huid plat tegen de necropsieplaat.
- Verwijder middelgrote tumoren of melkklieren/vetkussentjes en plaats deze in een conische buis van 50 mL met 5 mL R10 celwasmedium (R10 is RPMI) medium met 10% foetaal runderserum (FBS).
- Vermijd indien mogelijk het gebruik van necrotische of bloedbevattende tumoren (die zeer donker van kleur en zacht zijn).
- Transfer in een biologische veiligheidskast uitsluitend de melkvetkussentjes en tumoren naar een schone petrischaal. Hak het weefsel fijn met twee chirurgische scalpelbladen totdat het een pasta-achtige consistentie heeft, en plaats het vervolgens in een schone buis van 50 mL. Voer deze stap uit bij RT.
- Voeg per monster 10 mL digestie-cocktail toe.
- Incubeer in een schudincubator bij 37 °C op 250 omwentelingen per minuut (rpm) gedurende 30 min.
- Voeg 0,5 M EDTA toe tot een eindconcentratie van 10 mM (200 µL EDTA/10 mL digestiebuffer).
- Plaats terug in de schudincubator bij 37 °C en 250 rpm voor nog eens 5 min.
- Voeg 40 mL R10 celwasmedium toe om de reactie te stoppen.
- Filtreer de gedigesteerde cellen door een 70 µm filter in een schone buis van 50 mL om klonten te verwijderen.
- Centrifugeer bij 500 x g met versnellingsinstelling 9 en vertragingsinstelling 6, bij 4 °C gedurende 10 min (indien men enkel geïnteresseerd is in lymfocyten, kan de centrifugatiekracht worden verlaagd naar 300 x g gedurende 5 min)14 om de cellen te pelletten. Aangezien dit de dissociatie betreft van melkklierweefsel, dat rijk is aan adipocyten, helpt een protocol met verminderde remming bij het behouden van de gradiënt die wordt gevormd door de drijvende aard van adipocyten tijdens centrifugatie13.
- Giet het supernatant af in het biologisch afval, resuspendeer de pellet en voeg 40 mL celwasmedium toe, centrifugeer vervolgens zoals hierboven beschreven (stap 1.15). Voor volgende stappen kan de remming weer worden teruggezet op volledige vertraging. Het niet doen hiervan heeft geen negatieve invloed op het monster.
- Was met 40 mL R10 celwasmedium en centrifugeer zoals in stap 1.15 voor in totaal 3 wasbeurten.
- Resuspendeer de pellet en de cellen in 2 mL koude 1 × PBS.
- Voeg twee volumes 1× RBC-lysebuffer toe. Verdun 10 × lysebufferconcentraat tot 1 × met water (bijv. 2 x = 2 mL 1 × PBS + 4 mL lysebuffer). Voer deze stap uit bij RT.
- Incubeer bij kamertemperatuur gedurende 5 min door de buis af en toe voorzichtig om te keren en te mengen.
- Neutraliseer de RBC-lysebuffer door een gelijk volume R10 celwasmedium toe te voegen.
- Filtreer de celoplossing door een 30 µm filter in een buis van 15 mL om cellulair debris te verwijderen.
- Vul het volume aan tot 15 mL met R10 celwasmedium.
- Centrifugeer bij 500 x g gedurende 10 min bij 4 °C.
- Verwijder het supernatant volledig en resuspendeer in celwasmedium tot een eindvolume van maximaal 5 mL voor telling en levensvatbeoordeling. Resuspendeer tot de gewenste verdunning. Ga verder met kleuren voor flowcytometrie of voorbereiding voor scRNA-seq.
- Houd de cellen op ijs tussen de stappen door, tenzij anders aangegeven.
2. Kleuren van een enkelcel-suspensie voor flowcytometrie
- Breng de gewenste cellen over naar een polypropyleen rondbodembuis van 5 mL en bewaar deze op ijs.
- Maak een celkleuringsoplossing met de gewenste monoklonale antilichamen (mAb) geconjugeerd aan fluorescentie-tags in een totaalvolume van (n + 1) × 100 µL met behulp van flow PBS (490 mL 1x PBS, 10 mL FBS, 0,5g natriumazide). Bereid (n+1) × 100 µL kleuringsoplossing voor, waarbij n = het aantal monsters (bijv. 6 × 100 µL = 600 µL voor 5 monsters).
OPMERKING: Natriumazide is in poedervorm een carcinogeen. Draag geschikte persoonlijke beschermingsmiddelen en spoel alle apparatuur om er zeker van te zijn dat het azide is opgelost voordat het in de chemische afvalcontainer wordt afgevoerd. - Centrifugeer elk te kleuren monster gedurende 5 min bij 4 °C op 500 x g. Resuspendeer in 100 µL kleuringsoplossing. Resuspendeer niet-gekleurde controles in 1000 µL flow PBS.
- Dek de buisjes af om ze tegen licht te beschermen en incubeer bij 4 °C gedurende 15 min.
OPMERKING: Fluorescentie-getagde antilichamen kunnen degraderen bij langdurige blootstelling aan licht en moeten tijdens de incubatie en daaropvolgende bewaring van de monsters afgedekt blijven. - Voeg 1 mL flow PBS toe aan elk gekleurd buisje en centrifugeer bij 500 x g, 4 °C, gedurende 5 min om te wassen.
- Verwijder het supernatant, breek het pellet en resuspendeer de cellen in 1 mL flow PBS. Centrifugeer zoals eerder beschreven (Stap 2.5).
- Herhaal stap 2.6 voor in totaal drie wasbeurten. Verwijder het supernatant en breek de pellets.
- Resuspendeer de cellen in fixatieoplossing of flow PBS, afhankelijk van de daaropvolgende vereiste kleuringen.
- Gebruik deze stap indien de cellen worden gefixeerd of indien een intracellulaire kleuring wordt uitgevoerd. Ga anders verder naar Stap 2.10:
- Voeg 200 µL permeabilisatie-/fixatieoplossing toe aan elk monster om intranucleaire kleuring mogelijk te maken.
- Dek de cellen af met aluminiumfolie en laat ze ten minste 20 min incuberen bij 4 °C. Indien de monsters op een andere dag worden geanalyseerd, kunnen ze bij deze stap afgedekt bewaard worden bij 4 °C gedurende de nacht.
- Centrifugeer de monsters na fixatie bij 500 x g gedurende 5 min en resuspendeer in 1 × permeabilisatiebuffer (verdund in water).
- Bij het voorbereiden van een secundaire of intracellulaire kleuring: kleur de monsters bij de gewenste verdunning in 1x permeabilisatiebuffer. Plaats de afgedekte buisjes 15–20 min in de incubator bij 4 °C.
- Voeg 1 mL 1x permeabilisatiebuffer toe aan elk gekleurd buisje en centrifugeer bij 500 x g gedurende 5 min om te wassen.
- Verwijder het supernatant, breek het pellet en resuspendeer de cellen in 1 mL 1x permeabilisatiebuffer. Centrifugeer zoals eerder beschreven (Stap 9.5).
- Herhaal stap 2.9.6 voor in totaal drie wasbeurten. Verwijder het supernatant en breek de pellets.
- Resuspendeer de cellen in 200 µL 1x permeabilisatiebuffer en bewaar op ijs tot ze klaar zijn voor analyse op een flowcytometer.
- Indien de cellen niet worden gefixeerd, resuspendeer deze dan in 200 µL flow PBS en bewaar op ijs tot ze klaar zijn voor analyse op een flowcytometer.
- Volg voor scRNA-Seq-analyse de protocollen voor het verwijderen van debris en dode cellen, het beoordelen van de RNA-kwaliteit en het genereren van libraries.
3. Beoordeling van de scRNA-Seq-bibliotheekkwaliteit
- Letten op een hoog percentage reads dat met zekerheid aan cellen is toegewezen. Idealiter is dit getal groter dan 90%.
- Vergelijk de aantallen unieke moleculaire identificatoren (UMI's) met de barcodes. Een monster van hoge kwaliteit vertoont een scherpe daling in het aantal UMI's bij ongeveer 10.000 barcodes (de 'knik' in de barcode-rangplot).
- Bestudeer de uniform manifold approximation and projection (UMAPs). Een monster van hoge kwaliteit uit complexe weefsels, zoals melkklieren of spontane mamma-tumoren, zal duidelijke, goed gescheiden celclusters vertonen.
- Stel het aantal tot expressie gebrachte mitochondriale (mt-) genen vast; clusters met een hoog aantal mitochondriale genen duiden erop dat de cellen dood zijn of afsterven.
Resultaten
HER2 is een tumor-oncogen dat agressieve mammatumoren bij vrouwen aanstuurt, en tot 70% van de vrouwen die worden behandeld met HER2-gerichte monoclonale therapieën zal ofwel niet reageren of resistentie ontwikkelen tegen HER2-gerichte therapie15,16,17,18. Het uiteindelijke doel is om een immuunrespons tegen HER2/neu te activeren om de HER2-immuniteit te verbeteren en de overleving te verhogen. Om de HER2/neu-immuniteit te bestuderen, worden immuuncompetente muismodellen gebruikt die spontane mammatumoren ontwikkelen die worden aangestuurd door HER2/neu2,19. HER2 wordt gecodeerd door het menselijke Erbb2 en neu door het ratten-Erbb2. BALB NeuT-muizen dragen een transformerend ratten-neu (NeuT) transgen, aangestuurd door de MMTV-promotor19. Neu wordt tot expressie gebracht in de melkklieren van puberterende vrouwelijke muizen met een BALB-achtergrond, wat leidt tot de ontwikkeling van ductaal carcinoom (Afbeelding 1A, inzet) in alle transgene vrouwtjes in één of alle melkklieren. Continue expressie van neu leidt tot tastbare tumoren tussen de 14 en 19 weken oud, die progressief groeien1. Vaccinatie van transgene muizen met plasmide-DNA dat zowel autoloog neu als heteroloog HER2 codeert (aangeduid als pNeuE2TM) kan de immuuntolerantie voor neu doorbreken, wat leidt tot een toename van systemische neu-gerichte polyklonale antilichamen en IFN-γ-secreterende milt-T-cellen1. Deze immuunrespons leidde tot afstoting van neu-expresserende TUBO-tumorcellen. Hoewel de systemische respons informatief is, stelt deze ons niet in staat om het werkingsmechanisme op de plek van de tumor te begrijpen. Daarom zijn we begonnen met de ontwikkeling van een dissociatieprotocol voor melkklier- en mammatumorweefsels dat enkelcellen oplevert met een hoge levensvatbaarheid, terwijl celoppervlaktemarkers behouden blijven. Afbeelding 1 geeft een overzicht van de workflow. Kort samengevat wordt het weefsel na afname fijngehakt met scalpels (Afbeelding 1B) en gedurende 30 min in een schuddende incubator (Afbeelding 1C–D) geplaatst in een op RPMI gebaseerde weefseldigestiebuffer die een combinatie bevat van 2 delen collagenase type II op 1 deel collagenase D en DNase I, gevolgd door een extra 5 min met 0,5 M EDTA (Afbeelding 1E). De digestie wordt gestopt door toevoeging van een washbuffer met FBS, en het mengsel wordt gefiltreerd om weefselresten te verwijderen (Afbeelding 1F). Na wasstappen en lyse van rode bloedcellen (Afbeelding 1G–H) worden de cellen door een 30 m zeef geleid en geteld (Afbeelding 1I–K en Afbeelding 2). Op dit punt kunnen de cellen worden toegewezen aan downstream workflows zoals flowcytometrie of scRNA-Seq.
Voor een directe vergelijking werd de dissociatie parallel uitgevoerd met behulp van een commerciële kit. Het gepubliceerde protocol werd gevolgd voor 'Tough'-tumoren, en na enzymneutralisatie werden de monsters op dezelfde manier behandeld (d.w.z. RBC-lyse, enz.). Met de commerciële kit werden 1.3 × 10⁶ cellen/mL teruggewonnen met een levensvatbaarheid van 76%, terwijl met het hier beschreven protocol 4.5 × 10⁶ cellen/mL werden teruggewonnen met een levensvatbaarheid van 89% (Figuur 2A,B). De hoeveelheid debris tussen de twee protocollen was vergelijkbaar na de RBC-lyse. Om dode cellen te verwijderen, werden 1 × 10⁷ cellen van elk protocol verwerkt via de pijplijn voor het verwijderen van dode cellen. De commerciële kit leverde 1.3 × 10⁶ cellen/mL op met een levensvatbaarheid van 96%, vergeleken met 1.94 × 10⁶ cellen/mL en een levensvatbaarheid van 98% voor het hier beschreven protocol (Figuur 2C,D). Hiermee leverde het hier beschreven protocol een hogere opbrengst aan levensvatbare cellen op voor downstream-analyses zonder dat er gespecialiseerde apparatuur nodig was.
Om specifiek de kwaliteit en reproduceerbaarheid van de cel-suspensies verkregen via het hier beschreven protocol te evalueren, werden melkkliermonsters verzameld van naïeve vrouwelijke BALB- en BALB NeuT-muizen op een leeftijd van 16–18 weken. BALB NeuT-weefsel bevatte zowel melkklier- als tumorweefsel. Er werd weefsel genomen uit de inguinale melkkliervetkussens (melkklieren 4 en 9), inclusief tumorweefsel van BALB NeuT, dat werd gedissocieerd tot een homogene oplossing voor verdere analyse. Let op dat de schildwachtlymfeklieren werden verwijderd voorafgaand aan de collectie van de melkklieren.
Na de verwerking werden de monsters geëvalueerd via flowcytometrie om het behoud van celoppervlaktemarkers en de celviabiliteit te bevestigen (Figuur 3), en via analyse met scRNA-Seq (Figuur 4) om de kwaliteit van de celpreparatie voor bibliotheekgeneratie te verifiëren. De viabiliteit van enkelvoudige cellen uit de melkklier of afgeleid van tumoren bedroeg gemiddeld ≥85% voorafgaand aan de verwijdering van dode cellen. Om een startcelpreparatie met een hoge viabiliteit voor scRNA-Seq te genereren, kunnen commercieel beschikbare kits voor het verwijderen van dode cellen en debris worden gebruikt. Volgens deze protocollen varieerde de viabiliteit van de enkelvoudige celpreparaties van 94% tot 98% (Figuur 2C,F). Cellen uit dit protocol werden gefixeerd en vergeleken met de aanbevolen fixatiemethode voor scRNA-Seq, aangeduid als een commercieel fixation-first dissociatieprotocol, waarbij commercieel thermolysine werd gebruikt (Figuur 2E,F). Het commerciële fixation-first dissociatieprotocol leverde 1,5 × 10⁷ cellen/mL op; de viabiliteit werd hierbij niet gemeten omdat het weefsel wordt gefixeerd vóór de dissociatie, terwijl dit protocol 8,6 × 10⁶ cellen/mL opleverde bij een startviabiliteit van 94%. Hiermee leverde de methode van het commerciële fixation-first dissociatieprotocol een vergelijkbaar of iets hoger aantal cellen op dan het hierin beschreven protocol.
Cellen werden gekleurd en geanalyseerd op celoppervlaktemarkers met behulp van flowcytometrie. Epithelcellen (Figuur 3A) en fibroblasten (Figuur 3B) werden geïdentificeerd door kleuring met respectievelijk EpCAM en Pdgfrb/CD140a mAb. Aangezien een drievoudige vaccinatie van BALB NeuT-muizen met HER2/neu DNA resulteerde in een significante vertraging van het begin van de tumor en systemische immuniteit, was het van bijzonder belang om immuuncellen in de melkklieren en tumoren te beoordelen. CD45+ cellen van de immuunlijn maakten ongeveer 50% van de celsuspensie uit (Figuur 3C). De aanwezigheid van B- en T-cellen werd beoordeeld met behulp van B220/CD45R en CD3 (Figuur 3D), en CD3+ T-cellen werden verder onderverdeeld in CD4 en CD8 (Figuur 3E). Om het vermogen om zeldzame celpopulaties te behouden te beoordelen, werden monsters gekleurd voor regulatoire T-cellen. Hiervoor werd het celmonster gefixeerd en gekleurd voor de Treg-specifieke transcriptiefactor Foxp3. Regulatoire T-cellen vormen doorgaans een klein deel van de totale immuunpopulatie van het lichaam, hoewel hun rol bij de modulatie van het immuunsysteem van groot belang is in de gebieden van kankeronderzoek en auto-immuunziekten. Daarom is de betrouwbare vastlegging van kleine maar robuuste immuuncelpopulaties, zoals regulatoire T-cellen, cruciaal bij het overwegen van een weefseldissociatieprotocol. Foxp3+ regulatoire T-cellen werden geïdentificeerd door eerst CD3+CD4+ cellen te sub-gaten op expressie van CD25 (de receptor met hoge affiniteit voor IL-2) en Foxp3. Met behulp van deze gating-strategie waren ~5% van de CD4+ cellen positief voor beide markers, terwijl ~25% positief waren voor Foxp3 maar laag of negatief voor CD25 (Figuur 3F). CD64 werd geëvalueerd op een apart tumormonster om te bevestigen dat CD64+ macrofagen succesvol konden worden geïsoleerd met deze dissociatietechniek (Figuur 3G). Om bredere myeloïde groepen te identificeren, werden F4/80+ macrofagen en F4/80- CD11c+ cellen geïdentificeerd als dendritische cellen (Figuur 3H). Dendritische cellen maakten ongeveer 3% van de totale cellen uit, terwijl CD11b+Ly6G+ neutrofielen ~5% uitmaakten (Figuur 3H,I). Er werd dus een betrouwbare recovery en behoud van oppervlakte-epitopen bereikt in CD45+ cellen na dissociatie van zowel melkklier- als tumorweefsel met behulp van het bovenstaande protocol.
Voorafgaand aan indiening voor de generatie van scRNA-Seq-bibliotheken kunnen monsters worden beoordeeld op RNA-integriteit. Verse monsters die zijn bereid volgens het commerciële protocol of het hier beschreven protocol, leverden respectievelijk A260/230-ratio's van 1,9 en 2,2 op. Gefixeerde monsters worden beoordeeld door het percentage reads te bepalen dat groter is dan 200 nucleotiden (nt). Het hier beschreven protocol, gevolgd door onmiddellijke fixatie en bewaring bij –80 °C, resulteerde in 83% van het monster met reads > 200 nt.
Kwaliteit van de monsters
Na de scRNA-Seq bibliotheekpreparatie en sequencing werd de monsterkwaliteit beoordeeld (Figuur 4). scRNA-Seq monsterbibliotheken worden eerst geëvalueerd aan de hand van metrieken voor cell calling en mapping-kwaliteit, de barcode rank plot, sequencing-verzadiging en UMAP-projecties. Dissociatie van BALB-borstweefsel met behulp van het hier beschreven dissociatieprotocol leverde 16.182 cellen op, waarbij 97% van de reads aan cellen werd toegewezen; dit wijst op een gezond monster, aangezien weinig reads aan extracellulair RNA werden toegewezen. Een significant percentage reads dat buiten de cel is geregistreerd, duidt op verhoogde niveaus van ambient mRNA-contaminatie door dode of stervende cellen. De mapping-kwaliteit is het percentage probes dat in de probe-set is gemapt; dit was 99,1%. De sequencing-verzadiging vertoonde een plateau, wat wijst op replicatie van reeds geïdentificeerde genen in plaats van unieke genen. De barcode rank plot toont UMI-counts versus barcodes, en een monster van hoge kwaliteit vertoont een duidelijke daling, of 'knieknik', bij ~10K UMIs (Figuur 4A). Ten slotte laat de UMAP-projectie verschillende duidelijke clusters zien (Figuur 4A). Al deze metrieken wijzen op een scRNA-Seq bibliotheek van hoge kwaliteit.
Om de kwaliteit van dit protocol te vergelijken met het aanbevolen commerciële dissociatieprotocol waarbij eerst wordt gefixeerd voor Flex-chemie, is een commercieel fixatie-eerst-dissociatieprotocol zij aan zij uitgevoerd met het hier beschreven protocol, waarna de resulterende bibliotheek op kwaliteit is beoordeeld. Het commerciële fixatie-eerst-dissociatieprotocol voor BALB-melkkliermonsters leverde 720 cellen op, met 68% reads in cellen en een mappingkwaliteit van 89,3%. Evenzo begon de verzadiging af te vlakken, maar de genen/cel-aantallen waren aanzienlijk lager dan bij live dissociatie (4.500 genen/cel voor live versus 1.000 genen/cel voor een commercieel fixatie-eerst-dissociatieprotocol). De barcode-rangplot vertoont geen knik (Figuur 4B), en hoewel er duidelijke clusters aanwezig zijn, zijn deze minder talrijk (Figuur 4B).
Ook bibliotheken van klierweefsel uit BALB NeuT-tumoren werden beoordeeld op kwaliteit (Figuur 4C,D). Met behulp van de hier beschreven levende dissociatie werden 18.077 cellen gesequenced, waarbij 97% van de reads in cellen zat en 99,1% werd toegewezen aan de probe-set. Er was een duidelijke knik zichtbaar (Figuur 4C), evenals een heldere scheiding tussen clusters (Figuur 4C). Het commerciële protocol voor dissociatie waarbij fixatie eerst plaatsvindt, presteerde beter wanneer er een tumor aanwezig was, met 7.119 gesequencete cellen, 91% van de reads in cellen en 98,6% van de reads toegewezen aan de probe-set. Er was een betere knik in de barcode-rangplot (Figuur 4D), maar ondanks de sequencing-verzadiging bevatten de UMAP-projecties weinig duidelijke clusters (Figuur 4D).
Aanvullende kwaliteitsmetrieken omvatten het bepalen van het aantal mitochondriale genen dat door celclusters wordt tot expressie gebracht. Een goede scheiding van cellen is indicatief voor de monsterkwaliteit, waarbij een hoog percentage 'reads in cell' de vitaliteit van het monster aantoont. Cellen met een hoog aantal mitochondriale genen (aangeduid als 'mt-') kunnen worden geïdentificeerd en verwijderd met behulp van open-source clusteringtools en tools van leveranciers. Directe monstervergelijking kan worden uitgevoerd door monsters te aggregeren met de Cell Ranger-applicatie, wat een directe bioinformatische vergelijking mogelijk maakt, of door het 'integration'-script in open-source clusteringtools en tools van leveranciers te gebruiken. Celclusters worden geïdentificeerd door te zoeken naar bekende markers voor cellijnen (bijv. CD45/Ptprc voor immuuncellen, EpCAM voor epitheelcellen, Fap of Pdgfra voor fibroblasten). Als een celcluster niet kan worden gedefinieerd door bekende markers voor cellijnen, kunnen de 10–15 meest sterk tot expressie gebrachte genen worden geanalyseerd met gene-set enrichment-tools om inzicht te krijgen in het mogelijke celtype. Alternatief kunnen de meest tot expressie gebrachte genen worden opgezocht via reference cell-atlas-tools voor expressie in bekende celtypen.
Cellen met een hoog aantal mitochondriale genen werden uit elk monster verwijderd, waardoor 16.114 cellen (0,5% van de cellen met veel mitochondriale genen) in de BALB-melkkliert en 18.024 cellen (0,3%) in de BALB NeuT overbleven. Binnen de monsters van het commerciële dissociatieprotocol met eerst fixatie behield de BALB-melkkliert 627 (13% van de cellen met veel mitochondriale genen) en de BALB NeuT 6.181 (14%) cellen.
Voor het hier beschreven protocol voor live-cell dissociatie is integratie uitgevoerd tussen de melkklieren van BALB en BALB NeuT, zoals weergegeven in Figuur 4E,F. Vergelijking van de monsters toonde vergelijkbare celpopulaties tussen de bibliotheken (Figuur 4E, F, en Tabel 1). Celclusters werden gelabeld met behulp van bekende markers voor cellijnages, waarna vergelijkingen tussen de monsters werden gemaakt. De immuuncelpopulaties bevatten T-cellen, B-cellen en macrofaagclusters, terwijl de niet-immuuncelpopulaties epitheelcellen, fibroblasten en endotheelcellen bevatten. Niet verrassend bevatte het BALB NeuT-monster een extra populatie tumorcellen (Figuur 4F). Bij het bekijken van specifieke celpopulaties waren er meer macrofagen in het tumorhoudende BALB NeuT-monster, maar minder T-cellen en niet-tumorale epitheelcellen. scRNA-Seq-analyse toonde een vergelijkbare populatie epitheelcellen afkomstig uit de BALB-melkklier en een significante populatie epitheel-/tumorcellen in het NeuT-tegenhanger. De dimensionale reductieplot laat een duidelijk onderscheid zien tussen de normale residente epitheelcelpopulatie van de melkklier en de epitheliale tumorcellen die specifiek zijn voor het BALB NeuT-monster (Figuur 4E,F).
Na het vaststellen van de epitheliale populaties werden de stromale cellen geëvalueerd tussen de BALB- en BALB NeuT-monsters. Analyse van het fibroblast-geëxprimeerde platelet-derived growth factor receptor alfa-gen (Pdgfrα) identificeerde een aparte populatie fibroblasten in zowel de BALB- als de BALB NeuT-monsters. In het BALB scRNA-Seq-monster vormden Pdgfrα-exprimerende fibroblasten 15% van de cellen, wat iets minder was dan de analyse via flowcytometrie, waarbij fibroblasten 29% van de cellen uitmaakten (Figuur 3B). Na gating op levensvatbaarheid en single-cell status werden fibroblasten via flowcytometrie geïdentificeerd met behulp van de PDGFRα (CD140a) marker. De resultaten die in de monsters werden waargenomen, ongeacht de downstream analysemethoden, bevestigen de consistentie van dit dissociatieprotocol over tijd en over meerdere tests.
Het CD45-eiwit wordt gecodeerd door het Ptprc -gen, en RNA-sequencing van Ptprc-expresserende cellen onthulde zeer identificeerbare lymfocytclusters binnen het monster (Figuur 4E). Om lymfocytpopulaties verder te evalueren, werden de cellen geanalyseerd op B- en T-celpopulaties met behulp van Cd3e+ of Cd79a+ (Figuur 4E,F). Deze populaties waren duidelijk onderscheidbaar bij evaluatie van de single-cell sequencing-gegevens, hoewel scRNA-Seq verder verschillende subclusters van Cd3-expresserende T-cellen identificeerde. Aanvullende tellingen van immuuncellen uit de sequencing-analyse toonden een toename van macrofagen in het BALB NeuT-monster, zoals aangegeven door de expressie van Itgam and Adgre1 (F4/80) (Figuur 4F). Om de identificatie van zeldzame celpopulaties in scRNA-Seq te beoordelen, werden regulatoire T-cellen geïdentificeerd aan de hand van hun Foxp3-expressie (Figuur 4F). Regulatoire T-cellen zijn aanwezig in de scRNA-Seq-libraries, maar waren niet overvloedig genoeg om als een afzonderlijke cluster te worden geïdentificeerd. In plaats daarvan clusterden ze samen met de T-cellen en natural killer (NK)-cellen.
Ten slotte is het vermogen om neutrofielen (PMN's) binnen scRNA-Seq-bibliotheken te identificeren een bron van frustratie geweest en is dit niet gelukt met andere commercieel beschikbare protocollen voor mammadissociatie20. Met behulp van flowcytometrie werd vastgesteld dat ~5% van de immuuncellen neutrofielen waren die Ly6G en CD11b tot expressie brachten (Figuur 3H). Om neutrofielen binnen scRNA-Seq-bibliotheken te identificeren, is de aanbeveling om opnieuw te clusteren met behulp van vendor-pipelines om cellen onder de standaard 'knee bend' aan te wijzen. Deze procedure is uitgevoerd voor zowel de BALB- als de BALB NeuT-bibliotheken van de melkklieren. Dotplots van genen die doorgaans geassocieerd worden met macrofagen (Ptprc, Adgre1, Mrc1) werden vergeleken met genen die door neutrofielen tot expressie worden gebracht (S100a8, Trem1, Clec4). Noch de BALB- noch de BALB NeuT-bibliotheken bevatten significante aantallen neutrofielen (Figuur 5A,B). Dit lijkt echter afhankelijk te zijn van de modelachtergrond, aangezien F1 NeuT-muizen op een BALB x PWK-achtergrond een celcluster vertoonden dat neutrofielmarkers tot expressie bracht (Figuur 5C).
Zo maakte dit dissociatieprotocol de elucidatie mogelijk van de celtypen binnen de melkklieren van BALB-muizen en BALB NeuT-muizen die spontane mammatumoren ontwikkelen. Omdat deze cellen zeer levensvatbaar zijn, kan deze techniek worden gebruikt om de antitumorimmuniteit en de anti-HER2/neu-functionaliteit van geïsoleerde immuuncelpopulaties te beoordelen.
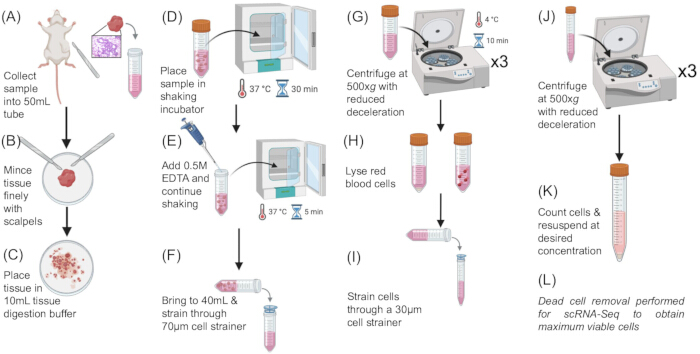
Figuur 1: Workflow voor weefseldissociatieprotocol. (A) Melkklieren of tumoren werden verwijderd (B,C), fijn gehakt (D) en gedigesteerd bij 37 °C onder schudden in een cocktail van collagenase type II, collagenase D en DNase I (E). EDTA werd toegevoegd en de digestie werd nog 5 min voortgezet. (F) De digestie werd gestopt door aan te vullen tot 40 mL met RPMI met 10% FBS (R10 wasmedium), waarna de suspensie werd gefilterd door 70 µm filters. (G) Celsuspensies werden gecentrifugeerd bij 4 °C en 500 × g gedurende 10 min en vervolgens 3 keer gewassen met RPMI wasmedium. (H) Rode bloedcellen (RBC) werden gelyseerd met behulp van een ammoniumchloride-gebaseerde 10 × RBC Lysis-oplossing. (I) R10 wasbuffer werd gebruikt om de lyse te stoppen en celsuspensies werden gefilterd door 30 µm filters. (J,K) Na lyse van de rode bloedcellen worden de cellen nog drie keer gewassen voordat de concentratie en levensvatbaarheid worden bepaald. (L) Wanneer de cellen worden gebruikt voor de generatie van een scRNA-Seq bibliotheek, worden dode cellen en debris verwijderd met commercieel verkrijgbare kits, volgens de bijbehorende protocollen. Klik hier om een grotere versie van deze figuur te bekijken.
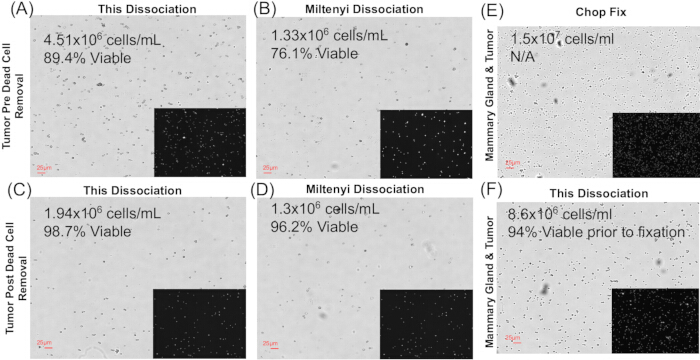
Figuur 2: Vergelijking van dissociatie. Gegevens over celtellingen en viabiliteit om het hier beschreven dissociatieprotocol te vergelijken met het commercieel beschikbare Miltenyi-protocol en een commercieel 'fixation-first' dissociatieprotocol dat wordt aanbevolen voor scRNA-Seq. De celgetallen na dissociatie werden verkregen met een automatische celteller met acridine orange/propidiumiodide (AO/PI) kleuring voor dode cellen. De cellen werden geteld en de viabiliteit werd vastgesteld na verwijdering van de dode cellen. (A–B) Celgetallen en viabiliteit vlak voor de verwijdering van dode cellen. (C–D) Celgetallen en viabiliteit na verwijdering van dode cellen, wat representatief zou zijn voor het monster dat de scRNA-Seq pipeline ingaat. (E–F) Celgetallen en viabiliteit bij vergelijking van het hier beschreven protocol met een commercieel 'fixation-first' dissociatieprotocol. Viabiliteit kon na dissociatie met het Liberase-bevattende protocol niet worden beoordeeld omdat het weefselmonster voorafgaand aan de dissociatie was gefixeerd. Klik hier om een grotere versie van deze figuur te bekijken.
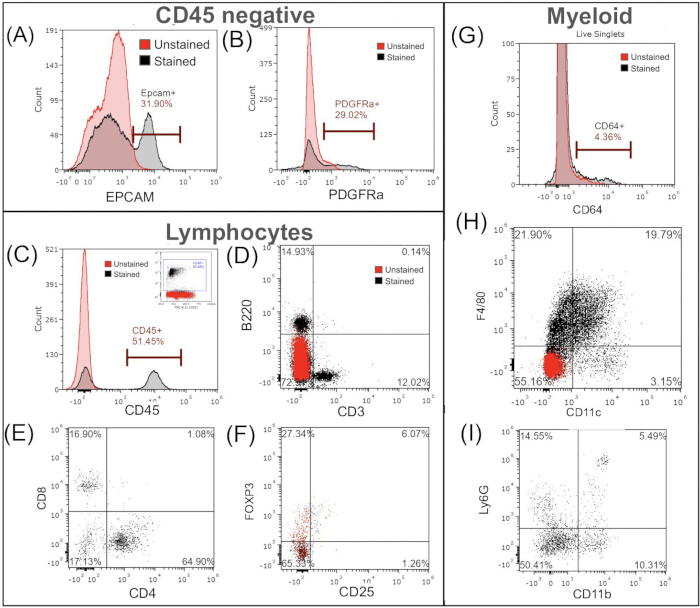
Figuur 3: Flowcytometrische analyse van gedissocieerde weefsels. Om de aanwezigheid en levensvatbaarheid van immuuncellen te waarborgen, werden representatieve BALB- en BALB NeuT-monsters geanalyseerd. Cellen werden eerst gegated op levensvatbaarheid, waarna singlets werden geïdentificeerd voorafgaand aan de identificatie van subgroepen. Om vast te stellen of cellen van epitheliale en stromale afkomst waren teruggewonnen, werden deze eerst beoordeeld. EpCAM werd gebruikt om cellen van epitheliale oorsprong te identificeren (A), en PDGFRa werd gebruikt om fibroblasten te identificeren (B). Om immuunpopulaties te evalueren, was 51% van de totale cellen CD45-positief in de melkklier (C). B-cel (B220+) en T-cel (CD3+) populaties werden verkregen uit gedissocieerd muis melkklierweefsel (D), en CD8+ en CD4+ populaties werden gesub-gat uit tumorweefsel (E). Om te bepalen of dit protocol effectief zeldzamere celpopulaties kan isoleren, (F) werden Treg in tumorweefsel beoordeeld met behulp van Foxp3+ expressie. Dit werd gedaan door eerst te gaten voor een CD3+ en CD4+ populatie, en binnen die populatie cellen te identificeren die Foxp3+ en CD25+ zijn (ongeveer 6%). (G) Evaluatie van CD64+ macrofagen uit tumorweefsel. (H) CD11b+ cellen werden verder geanalyseerd op expressie van F4/80 en CD11c, waarbij F4/80− CD11c+ cellen werden geïdentificeerd als dendritische cellen. (I) Neutrofielen werden geïdentificeerd als cellen die CD45+, Ly6G+ en CD11b+ tot expressie brachten, maar F4/80− waren. Klik hier om een grotere versie van deze figuur te bekijken.
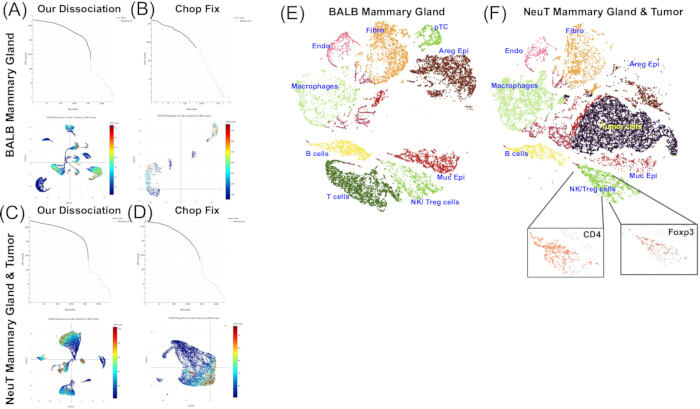
Figuur 4: Beoordeling van scRNA-Seq-bibliotheken. Gefixeerde monsters werden gebruikt om scRNA-Seq-bibliotheken te genereren; ofwel via het hier beschreven protocol voor dissociatie van levende cellen, gevolgd door fixatie zoals gerapporteerd in dit manuscript, of via het aanbevolen commerciële protocol voor dissociatie waarbij fixatie eerst plaatsvindt. (A) Kwaliteitscontrole voor de scRNA-Seq-bibliotheek van de BALB-melkklier via dissociatie van levende cellen. Er werden 16.182 cellen gesequenced, waarbij 97,1% van de reads betrouwbaar aan cellen werd toegewezen en 98,8% betrouwbaar aan de gefilterde probe-set. Bovenaan worden knee bend-plots weergegeven en daaronder de UMAP-projecties. Een scherpe knee bend en duidelijke celclusters duiden op bibliotheken van hoge kwaliteit. (B) Kwaliteitsbeoordeling voor een scRNA-Seq-bibliotheek van de BALB-melkklier via een commercieel protocol voor dissociatie waarbij fixatie eerst plaatsvindt, toont een gebrek aan een knee bend en weinig cellen (n = 720). (C) De BALB NeuT-melkklier scRNA-Seq-bibliotheek werd gegenereerd volgens het hier beschreven protocol. Er werden 18.077 cellen gesequenced, waarbij 97% van de reads aan cellen werd toegewezen en 98,9% aan de gefilterde probe-set. Een scherpe knee bend, samen met duidelijke clusters, demonstreert een goede kwaliteit, terwijl een BALB NeuT-bibliotheek via een commercieel protocol voor dissociatie waarbij fixatie eerst plaatsvindt (D) een zwakke knee bend vertoont, maar geen duidelijke celclusters over de 7.119 gesequencete cellen. Na de generatie van de bibliotheek werd Cell Ranger gebruikt om de BALB- en BALB NeuT-melkklierbibliotheken te integreren, gevolgd door K-Means clustering in de Loupe Cell Browser voor directe vergelijking. Tien unieke clusters definiëren de cellen die de BALB/c-melkklier vormen, zoals getoond op de T-SNE-plots (E,F). In de NeuT-transgene (F) melkklier was er een additionele populatie tumorcellen. Binnen de lymfocytcluster zijn Cd4- en CD8a-expresserende cellen overal verspreid. De expressie van Cd4 wordt in de inzet getoond. Regulatieve T-cellen, gedefinieerd door Foxp3-expressie, waren niet talrijk genoeg om een apart cluster te vormen, maar clusterden met T-cellen, zoals getoond in de gemarkeerde feature-plot. Klik hier om een grotere versie van deze figuur te bekijken.
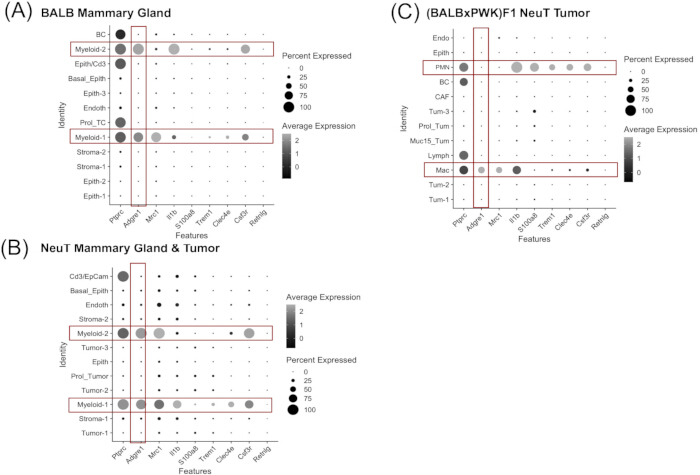
Figuur 5: Identificatie van neutrofielen (PMN). PMN zijn berucht moeilijk te identificeren in scRNA-Seq libraries vanwege hun lage RNA-transcriptieniveaus en zwakke Ly6g expressie. PMN in scRNA-Seq libraries kunnen worden geïdentificeerd door het 'count'-commando in Cell Ranger te gebruiken en de optie 'force cell = 8000' in de opdrachtregel op te nemen. Deze analyse werd uitgevoerd voor zowel de BALB (A) als de BALB NeuT (B) melkklier-libraries, maar weinig cellen vertoonden expressie van PMN-specifieke genen. Alle myeloïde celclusters in BALB en BALB NeuT vertoonden ook expressie van Adgre1 (F4/80) en Mrc1 (CD206). Zeer weinig cellen in de myeloïde populaties vertonen expressie van de PMN-specifieke genen S100a8, Trem1 en Clec4e. Deze bevinding is echter te wijten aan de BALB-achtergrond van het model, aangezien scRNA-Seq libraries die waren voorbereid met de dissociatietechniek van (BALBxPWK)F1 NeuT vrouwelijke muizen, zoals hier beschreven (C), zonder het force cell-commando, een cluster cellen bevatten dat PMN-specifieke genen vertoonde maar geen Adgre1. Dit benadrukt dat dit dissociatieprotocol inderdaad PMN's kan vastleggen naast andere myeloïde populaties. Rode rechthoekige kaders markeren clusters die Adgre1 tot expressie brengen. Klik hier om een grotere versie van deze figuur te bekijken.
| BALB NeuT-tumor | Flowcytometrie | scRNA-Seq |
| CD3 / Lymfocyten | 6% van het totaal aantal cellen (12% van de CD45+-cellen) | 7% van het totaal aantal cellen |
| CD4 / Cd4 | 3,9% van de totale cellen (65% van de CD45+CD3+ cellen) | 4% van het totaal aantal cellen |
| CD8 / Cd8a | 1% van het totaal aantal cellen (17% van de CD45+CD3+ cellen) | 0,9% van het totaal aantal cellen |
| Foxp3 / Foxp3 | 0,8% van de totale verkopen (33% van de CD3+CD4+-cellen) | 0,7% van de totale cellen |
| F4/80 / Adgre1 | 20% van het totaal aantal cellen | 16% van de totale cellen |
| CD64 / Fcgr1 | NT | 14% van het totaal aantal cellen |
| PMN/neutrofielen | 2% van de totale cellen (5% van de CD45+-cellen) | 0,05% van het totaal aantal cellen |
| PDGFRa (CD140a) / Stroma | 29% van de totale cellen | 10% van het totaal aantal cellen |
| EpCAM / Epitheel | 32% van het totaal aantal cellen | 54% van de totale cellen |
| NT, niet getest |
Tabel 1: Vergelijking van celpercentages verkregen uit dit dissociatieprotocol met behulp van downstreamtechnieken, waaronder single-cell RNA-sequencing en flowcytometrie.
Discussie
Dit dissociatieprotocol produceert consistent enkelcel-suspensies bestaande uit populaties die representatief zijn voor het ouderweefsel. Om representatieve celtypen - inclusief grotere fibroblasten en adipocyten-stamcellen - uit borstweefsel te isoleren, werd een centrifugale kracht van 500 x g gebruikt14,21,22. Viabiliteit en celoppervlakte-epitopen blijven betrouwbaar behouden over meerdere celtypen, waaronder immuun-, epitheel- en stromale populaties. Een van de logistieke voordelen van dit dissociatieprotocol is de relatief korte tijd die nodig is om van de initiële weefselverzameling naar een schone celsuspensie te gaan die klaar is voor verdere verwerking, zonder dat hiervoor gespecialiseerde apparatuur nodig is. In totaal duurt deze workflow ongeveer drie uur van begin tot eind, een voordeel ten opzichte van soortgelijke enzymatische dissociatieprotocollen waarbij de sample mogelijk een nacht lang aan het enzym moet worden blootgesteld. Dit protocol is ontwikkeld en wordt sinds 2023 in dit en andere laboratoria in de geleverde vorm gebruikt. In de afgelopen 6 maanden alleen al heeft het laboratorium het protocol 37 keer uitgevoerd met vergelijkbare resultaten, en alle opleidingsniveaus hebben het succesvol voltooid. Naast flowcytometrie en de generatie van scRNA-Seq-bibliotheken is het protocol gebruikt om tumor-infiltrerende lymfocyten (TIL) en tumor-geassocieerde macrofagen (TAM) te isoleren voor ex vivo functionele analyse. Hoewel de resultaten aantonen dat het dissociatieprotocol belangrijke celpopulaties kan identificeren, is het belangrijk op te merken dat flowcytometrie en scRNA-Seq fundamenteel verschillend zijn. Flowcytometrie is ontworpen om cellen te bestuderen op de expressie van meerdere markers op enkelcelniveau en maakt gebruik van gating en sub-gating om dit doel te bereiken. scRNA-Seq is daarentegen ontworpen om veranderingen in genexpressie binnen een cluster van cellen te identificeren zonder gating en sub-gating.
Het oplossen van problemen bij het protocol omvatte het volgende: 1) Onvolledige digestie: De digestie van weefselmonsters wordt sterk beïnvloed door fysieke dissociatie. Hak het weefsel fijn tot het op een pasta lijkt en verspreid het om de grootte van de weefselstukjes te controleren. Deze stap duurt vaak langer dan verwacht. Onvolledige dissociatie resulteert in een verminderd aantal stromale en epitheliale cellen in vergelijking met immuuncellen. 2) Lage levensvatbaarheid: De levensvatbaarheid van cellen wordt beïnvloed door de digestietijd en door ervoor te zorgen dat de 2:1 ratio van collagenase type II ten opzichte van collagenase D wordt gehandhaafd. Een gebrek aan collagenase type II zal leiden tot een significant verminderde cellevensvatbaarheid. Bovendien, als de levensvatbaarheid van het monster tussen 70–85% ligt, zijn commercieel verkrijgbare systemen voor het verwijderen van dode cellen effectief om de levensvatbaarheid te verbeteren en worden deze aanbevolen voordat monsters worden ingediend voor de generatie van scRNA-Seq libraries. 3) Veel celdebris: Celdebris is vaak een neveneffect van fysieke dissociatie en digestie. Debris wordt het meest effectief verwijderd met behulp van een medium met dichtheidsgradiënt of een commercieel verkrijgbare debris-verwijderingsoplossing met een significant lagere dichtheid. 4) Slecht herstel van het pellet: Slecht monsterherstel wordt primair beïnvloed door de hoeveelheid startweefsel. Dit protocol is geoptimaliseerd voor 2 melkklieren of middelgrote tumoren variërend tussen 10 en 20 mg. Als de startgrootte van het monster minder dan één melkklier bevat of een tumor kleiner is dan ~200 mm3, zal de celopbrengst laag zijn. Bij kleine weefselformaten kunnen de volumes met 50% worden verminderd. Evenzo kunnen de volumes worden verhoogd naar 1,5 × bij grote tumoren of meerdere melkklieren (meer dan 4 melkklieren of tumoren groter dan ~25 mg). Monsters groter dan ~25 mg moeten voor verwerking worden verdeeld. 5) Slechte scRNA-Seq kwaliteit: De kwaliteit van scRNA-Seq libraries is bijna volledig afhankelijk van de kwaliteit van het oorspronkelijke monster. Bij het werken met tumorweefsels is de timing van de initiële gel-bead in emulsion (GEM) en cDNA-generatie essentieel. Om deze reden elimineert een protocol dat natuurlijk overgaat in onmiddellijke RNA-fixatie, zoals een probe-gebaseerd fixed-RNA single-cell chemiesysteem, tijd als een variabele die de monsterkwaliteit beïnvloedt. Dat gezegd hebbende, zorgt het beoordelen van de RNA-kwaliteit vóór het betreden van de scRNA-Seq pipeline ervoor dat de resulterende libraries informatief zijn. 6) Lager dan verwacht aantal celclusters: Wanneer resultaten van scRNA-Seq lage niveaus van genexpressie in enkele unieke clusters laten zien, kunnen de libraries opnieuw worden gesequenced om het aantal reads (sequencing-diepte) te verhogen. Daarnaast zal, indien de studie uitsluitend gericht is op immuuncellen, het zuiveren van de CD45+ populatie vóór de generatie van de library de sequencing-gevoeligheid verhogen.
Het hierboven genoemde commerciële fixatie- en dissociatieprotocol bleek problematisch bij de verwerking van vetweefsel. In het bijzonder was het gefixeerde vetweefsel drijvend, waardoor verdere dissociatie en effectieve filtratie bemoeilijkt werden. Om deze reden wordt vetweefsel niet aanbevolen voor het hier gebruikte commerciële fixatie- en dissociatieprotocol. De fixatie van weefsel voorafgaand aan de dissociatie tot een single-cell suspensie maakte kwaliteitscontrole-stappen onmogelijk, zoals levensvatbaarheidsmetingen en dissociatie na fixatie. Hierdoor was het moeilijk om de monsterkwaliteit in te schatten vóór indiening voor downstream scRNA-seq, wat een noodzakelijke stap is in het weefseldissociatieproces. Weefselfixatie voor downstream scRNA-Seq kan leiden tot RNA-degradatie. De RNA-kwaliteit kan worden beoordeeld door de nucleotide (nt) read-lengte in gefixeerde celmonsters te onderzoeken. Hoe hoger het percentage van het monster met reads >200 nt, hoe beter de kwaliteit. Monsters met een RNA-integriteitsscore hebben >30% van het monster met reads >200 nt en kunnen vervolgens met een hoge mate van betrouwbaarheid worden gebruikt voor het genereren van scRNA-Seq libraries. De gefixeerde monsters van de BALB-melkklier en BALB NeuT-tumoreweefsels die hier worden gerapporteerd, vertoonden respectievelijk 83% en 82% reads >200 nt.
Weefsels met een hoog vetgehalte, zoals melkklieren, vormen een probleem omdat adipocyten de generatie van hoogwaardige celpreparaten kunnen verstoren. De meeste adipocyten blijven aan de bovenkant van de conische buis drijven en kunnen onder vacuüm of door het weggieten van het supernatant worden verwijderd. We hebben vastgesteld dat extreem vette melkklieren, zoals die van vrouwtjes met een New Zealand Obese (NZO) achtergrond, een extra stap vereisen: het afvegen van de bovenkant van de buis met een schoon, pluisvrij laboratoriumdoekje om de verwijdering van adipocyten te vergemakkelijken, gevolgd door extra wasstappen om het vet volledig te verwijderen. Melkklierweefsels hebben daarnaast de neiging een lagere opbrengst te hebben. Om dit probleem te beperken, worden monsters indien mogelijk samengevoegd om de celopbrengst te verhogen. Bij zeer stevige tumoren is een goede versnippering essentieel, omdat dit de collagenasen een gereduceerd oppervlak biedt om te verteren binnen de tijd die nodig is voor het genereren van zeer levensvatbare enkelcellen.
Dit protocol kent echter beperkingen. Het volledig verteren van epitheelcellen tot een enkelcellige suspensie is uitdagend wanneer men een heterogeen cellengemengsel wil verkrijgen. De BALB NeuT-melkkliertumoren zijn over het algemeen stevig, met een tumorcapsule en een robuuste stromale component. Daarentegen vereist het verzamelen van infiltrerende immuuncellen slechts minimale blootstelling aan het enzym, en overblootstelling kan hun fenotypische status veranderen. Om tumor- en stromale cellen te verzamelen, moet er dus een middenweg worden gevonden om de kwaliteit van dit diverse scala aan celtypen, inclusief infiltrerende neutrofielen, te behouden. Hierdoor kunnen de proporties epitheel- en stromale cellen die met dit protocol worden verkregen, lager zijn dan de werkelijke representatie in het oorspronkelijke weefsel. Dit protocol is geoptimaliseerd door middel van talrijke proeven waarbij collagenase-enzymverhoudingen en dissociatietijden zijn geëvalueerd om de beste praktijken te bepalen voor het verzamelen van een zeer levensvatbare en toch heterogene monster van hoogwaardige cellen. Met gebruik van dit protocol omvatten toekomstige richtingen ex vivo functionele analyse van infiltrerende immuuncellen tijdens het begin en de progressie van melkkliertumoren om kansvensters voor behandeling te identificeren.
Openbaarmakingen
De auteurs hebben geen conflicten van belangstelling om te melden.
Dankbetuigingen
De hier gepresenteerde gegevens zijn gedeeltelijk verkregen met instrumentatie in de Genomics Core (RRID: SCR_012406), ondersteund door het Office of Research & Innovation van de Michigan State University.
Dit werk werd gefinancierd door CA278818.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| RPMI | Gibco | 11875-093 | |
| DNase | Invitrogen | 18047019 | |
| Collagenase D | Sigma | 11088866001 | |
| Collagenase II | Worthington Biochemical | LS004177 | |
| Foetaal runderserum | VWR | 97068-085 | |
| 10x PBS | Gibco | 70011-044 | |
| Natriumazide | VWR | 0639-250G | |
| MACS Smart Strainer, 70 µm | Miltenyi Biotec | 130-110-916 | |
| MACS Smart Strainer, 30 µm | Miltenyi Biotec | 130-110-915 | |
| EDTA | Millipore | 324506-100ML | |
| 10x RBC-lysisbuffer | eBioscience/Invitrogen | 00-4300-54 | |
| Foxp3/transcriptiefactor fixatie/permeabilisatiekit | eBioscience/Invitrogen | 00-5523-00 | |
| Brilliant Stain Buffer | Invitrogen | 00-4409-42 | |
| Mojosort Dead Cell Removal Kit | Biolegend | 580157 | |
| Mojosort-buffer (5x) | Biolegend | 480017 | |
| Quick-RNA Miniprep Plus Kit | Zymo Research | R1057 | |
| Tumordissociatiekit, muis | Miltenyi Biotec | 130-096-730 | |
| PDGFRα PerCP-eFluor710 | Invitrogen | 46-1401-80 | |
| Epcam eF450 | Invitrogen | 48-5791-82 | |
| CD11c APC | Biolegend | 117310 | |
| CD11b AF700 | Invitrogen | 56-0112-82 | |
| Fixeerbare levensvatigheidsverf eF780 | Invitrogen | 65-0865-14 | |
| B220/CD45R AF488 | Biolegend | 103225 | |
| CD3 PE-Cy7 | Invitrogen | 25-0031-82 | |
| CD49b PerCP-eFluor710 | Invitrogen | 46-5971-82 | |
| CD8a BV480 | Invitrogen | 414-0081-80 | |
| CD4 SB600 | Invitrogen | 63-0041-82 | |
| CD45 BV711 | Invitrogen | 407-0451-80 | |
| FOXP3 APC | Invitrogen | 17-5773-82 | |
| Ly6G APC | Invitrogen | 17-5931-82 | |
| Ly6C PECy7 | Invitrogen | 25-5932-82 | |
| CD64 PerCP-eFluor710 | 46-0641-80 | ||
| TruStain | Biolegend | 101320 | |
| 10x Genomics GEM-X Flex Gene Expression Reagent Kit | 10x Genomics | (https://www.10xgenomics.com/blog/answering-your-questions-about-single-cell-analysis-in607 clinical-ffpe-samples);1000781 | |
| Attune NxT flowcytometer | Thermo Fisher Scientific | Gebruikt voor het verzamelen van flowcytometriegegevens met rode, blauwe en violette laserkanalen. | |
| FCS Express | De Novo Software | Gebruikt voor de analyse van flowcytometriegegevens. | |
| Tumor Dissociation-kit van Miltenyi | een commerciële kit voor tumordissociatie | ||
| Miltenyi-kit / Miltenyi-protocol | de commerciële kit" of "de referentiekit | ||
| Liberase-enzym | een commercieel thermolysine/collagenase-mengsel | ||
| Chop Fix | een commercieel protocol voor dissociatie na voorafgaande fixatie | ||
| Flex-chemie / Flex-chemiesysteem | een probe-gebaseerde single-cell chemie voor gefixeerd RNA | ||
| Seurat | (https://satijalab.org/seurat/) | open-source en commerciële clusteringtools | |
| Cell Ranger | open-source en commerciële clusteringtools | ||
| Loupe Cell Browser | open-source en commerciële clusteringtools | ||
| EnrichR | https://maayanlab.cloud/Enrichr/) | tools voor gene-set enrichment en referentie-celatlassen | |
| Tabula Muris | https://tabula400 muris.sf.czbiohub.org/visualisaties | tools voor gene-set verrijking en referentiecelatlassen | |
| Tabula Sapiens | https://tabula-sapiens.sf.czbiohub.org/ | tools voor gene-set enrichment en referentie-celatlassen | |
| Cellometer K2" instrument en "acridine orange / propidiumjodide (AOPI)" | een geautomatiseerde celteller met acridine-oranje/propidium-jodide (AO/PI) levensvatbaarheidskleuring | ||
| Kimwipe | een pluisvrij laboratoriumdoekje | ||
| STEMCELL Technologies | een medium met dichtheidsgradiënt (bijv. een medium van het type Ficoll of Percoll) | ||
| Ficoll/Percoll | #10 scalpelmesjes | ||
| twee #10 scalpels | |||
| Cellometer K2 + AOPI-reagens | een geautomatiseerde celteller met acridine-orange/propidium-jodide (AO/PI) levensvatbaarheidskleuring | ||
| STEMCELL Technologies | STAMCEL Technologies, www.stemcell.com, 2018 | ||
| Ficoll/Percoll | een medium voor dichtheidsgradiëntcentrifugatie | ||
| #10 scalpels | chirurgisch scalpelmesje | ||
| Foxp3/transcriptiefactor fixatie/permeabilisatiekit | commercieel verkrijgbare oplossing die intra-nucleaire kleuring mogelijk maakt |
Referenties
- Jacob JB, et al. Identification of actionable targets for breast cancer intervention using a diversity outbred mouse model. iScience. 2023;26(4):106320. doi:10.1016/j.isci.2023.106320.
- Jacob J, et al. Activity of DNA vaccines encoding self or heterologous HER-2/neu in HER-2 or neu transgenic mice. Cell Immunol. 2006;240(2):96–106.
- Radkevich-Brown O, Jacob J, Kershaw M, Wei WZ. Genetic regulation of the response to HER-2 DNA vaccination in human HER-2 transgenic mice. Cancer Res. 2009;69(1):212–8.
- Lee SH, et al. Activation function 1 of progesterone receptor is required for mammary development and regulation of RANKL during pregnancy. Sci Rep. 2022;12(1):12286. doi:10.1038/s41598-022-16289-x.
- Autengruber A, et al. Impact of enzymatic tissue disintegration on the level of surface molecule expression and immune cell function. Eur J Microbiol Immunol (Bp). 2012;2(2):112–20.
- Bondonese A, et al. Impact of enzymatic digestion on single cell suspension yield from peripheral human lung tissue. Cytometry A. 2023;103(10):777–85.
- Jankelow A, et al. Recent advancements in tissue dissociation techniques for cell manufacturing single-cell analysis and downstream processing. Stem Cells Transl Med. 2025;14(11):szaf055. doi:10.1093/stcltm/szaf055.
- Lombardo JA, et al. Microfluidic platform accelerates tissue processing into single cells for molecular analysis and primary culture models. Nat Commun. 2021;12(1):2858. doi:10.1038/s41467-021-23238-1.
- Sun H, Xu X, Deng C. Preparation of single epithelial cells suspension from mouse mammary glands. Bio Protoc. 2020;10(4):e3530. doi:10.21769/BioProtoc.3530.
- Rodriguez de la Fuente L, Law AMK, Gallego-Ortega D, Valdes-Mora F. Tumor dissociation of highly viable cell suspensions for single-cell omic analyses in mouse models of breast cancer. STAR Protoc. 2021;2(4):100841. doi:10.1016/j.xpro.2021.100841.
- Prater M, Shehata M, Watson CJ, Stingl J. Enzymatic dissociation, flow cytometric analysis, and culture of normal mouse mammary tissue. Methods Mol Biol. 2013;946:395–409.
- Burl RB, et al. Deconstructing adipogenesis induced by β3-adrenergic receptor activation with single-cell expression profiling. Cell Metab. 2018;28(2):300–9.e4.
- Rondini EA, et al. Single cell functional genomics reveals plasticity of subcutaneous white adipose tissue during early postnatal development. Mol Metab. 2021;53:101307. doi:10.1016/j.molmet.2021.101307.
- Sharifian Gh M, Norouzi F. Guidelines for an optimized differential centrifugation of cells. Biochem Biophys Rep. 2023;36:101585. doi:10.1016/j.bbrep.2023.101585.
- Pohlmann PR, Mayer IA, Mernaugh R. Resistance to trastuzumab in breast cancer. Clin Cancer Res. 2009;15(24):7479–91.
- Gajria D, Chandarlapaty S. HER2-amplified breast cancer: mechanisms of trastuzumab resistance and novel targeted therapies. Expert Rev Anticancer Ther. 2011;11(2):263–75.
- Swain SM, et al. Pertuzumab, trastuzumab, and docetaxel for HER2-positive metastatic breast cancer (CLEOPATRA): end-of-study results from a double-blind, randomised, placebo-controlled, phase 3 study. Lancet Oncol. 2020;21(4):519–30.
- Swain SM, Shastry M, Hamilton E. Targeting HER2-positive breast cancer: advances and future directions. Nat Rev Drug Discov. 2023;22(2):101–26.
- Boggio K, et al. Interleukin 12-mediated prevention of spontaneous mammary adenocarcinomas in two lines of HER-2/neu transgenic mice. J Exp Med. 1998;188(3):589–96.
- Gsell L, et al. Multi-cellular phenotypic dynamics during the progression of an immunocompetent breast cancer model. iScience. 2025;28(11):113808. doi:10.1016/j.isci.2025.113808.
- Kilroy G, et al. Isolation of murine adipose-derived stromal/stem cells for adipogenic differentiation or flow cytometry-based analysis. Methods Mol Biol. 2018;1773:137–46.
- Orr JS, Kennedy AJ, Hasty AH. Isolation of adipose tissue immune cells. J Vis Exp. 2013;(75):e50707. doi:10.3791/50707.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar