Muismodellen zijn essentieel voor het verdiepen van ons begrip van de embryonale ontwikkeling. Hier beschrijven we een protocol om eiwitten en transcripten te kleuren in volledig gefixeerde muizembryo's, en hoe de resulterende kleuring kwantitatief in drie dimensies kan worden geanalyseerd. Deze technieken maken de visualisatie en analyse van cruciale ontwikkelingsceltypen en processen mogelijk.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Methodenartikel
Geoptimaliseerde methoden voor het onderzoek naar de expressie van ontwikkelingsproteïnen en transcripten in complete muisembryo's
167 weergaven
⸱
11 september 2026
In dit artikel
Samenvatting
Samenvatting
Muismodellen zijn essentieel geweest voor het verdiepen van ons begrip van de embryonale ontwikkeling. Het analyseren van de expressie en lokalisatie van eiwitten en transcripten binnen embryo's is cruciaal om de cellulaire en moleculaire mechanismen te ontrafelen die ten grondslag liggen aan ontwikkeling en ziekte. Traditionele technieken voor het analyseren van transcripten en eiwitten in muisembryo's zijn echter beperkt. RNA in situ hybridisatie maakt whole-mount kleuring van transcripten mogelijk, maar mist de capaciteit voor multiplexing. Daarentegen maakt het maken van coupes van embryo's multiplexe targetkleuring mogelijk, maar slechts in twee dimensies (2D). Recentelijk zijn technieken zoals RNAscope en immunofluorescentiekleuring toegepast op whole-mount embryo's, waardoor multiplexing van targets in drie dimensies (3D) mogelijk is. Deze methoden maken het mogelijk om belangrijke interacties, signaalpaden en celtypen in kaart te brengen die nodig zijn voor de embryonale ontwikkeling, zonder de beperkingen van traditionele technieken.
Hier beschrijven we geoptimaliseerde methoden voor whole-mount kleuring van gefixeerde embryonale dag (E) 8.5 en E9.5 muizenembryo's met gebruik van RNAscope of immunofluorescentie. Beide maken multiplex detectie van maximaal 4 targets gelijktijdig in één embryo mogelijk. We bieden daarnaast een methode om immunofluorescentiekleuring te combineren met RNAscope in hetzelfde embryo om de wisselwerking tussen eiwitten en transcripten tijdens de ontwikkeling te visualiseren. Verder beschrijven we een pipeline voor confocale beeldvorming en 3D-analyse van targetexpressie over het gehele embryo en binnen gedefinieerde ontwikkelingsspecifieke celtypen met behulp van Zeiss Arivis Pro software. Samen maken deze methoden een uitgebreide analyse van gemultiplexte eiwit- en transcripttargets in 3D mogelijk, wat een krachtig systeem biedt voor het ontleden van cellulaire en moleculaire interacties tijdens de vroege tot midden-embryogenese.
Inleiding
Muismodellen zijn essentieel geweest voor de vooruitgang in de ontwikkelingsbiologie, omdat ze het mogelijk maken om mens-relevante ontwikkelingsprocessen in vivo te begrijpen dankzij de homologie tussen de ontwikkeling van muis en mens en de mogelijkheid om genexpressie te moduleren met behulp van sleuteltechnieken zoals Cre-LoxP of CRISPR/Cas91,2. Ongeveer 90% van de genomische regio's is geconserveerd tussen muizen en mensen3, en muizen en mensen delen veel ontwikkelingsprocessen. Zo volgen zowel muizen als mensen een vergelijkbare tijdlijn van embryogenese, inclusief de vorming van een zygote die zich ontwikkelt tot een blastocyste, gevolgd door implantatie en gastrulatie4. Bovendien is de ontwikkeling van de meeste organen vergelijkbaar tussen muizen en mensen. Zo volgen zowel het menselijke als het muizenhart een vergelijkbare sequentie van cardiac looping, septatie van de atria en ventrikels, klepvorming en vorming van het uitstroomkanaal om een vierkamerhart te vormen5. Bijgevolg vertonen zowel ontwikkelende als volledig ontwikkelde muizen- en mensenharten aanzienlijke structurele gelijkenissen6,7.
Om de processen te onderzoeken die plaatsvinden tijdens normale en pathologische ontwikkeling, zijn meerdere technieken ontwikkeld waarmee sleuteleiwitten en transcripten ruimtelijk gevisualiseerd kunnen worden. Dergelijke technieken omvatten immunofluorescentiekleuring en RNA in situ hybridisatie.
RNA in situ hybridisatie werd voor het eerst beschreven door Gall en Pardue8 en John, Brinstall en Jones in 19699, en door Buongiorno-Nardelli en Amaldi10 in 1970. Het wordt gebruikt om de expressie van transcripten in weefsel te bestuderen8. Kort samengevat worden probes geselecteerd die een complementaire RNA-sequentie bevatten voor het gewenste doelwit, waarna deze worden gelabeld met markers voor detectie. Dergelijke labels omvatten radioactieve labels, biotine of digoxigenine. Gefixeerde monsters worden gepermeabiliseerd om penetratie van de probe mogelijk te maken, waarna de probe aan het weefsel wordt gehybridiseerd. Weefsels kunnen vervolgens direct worden afgebeeld als ze radioactief gelabeld zijn, of de labels kunnen worden gevisualiseerd met behulp van antilichamen geconjugeerd aan alkalische fosfatase of een fluorescerende kleurstof. RNA in situ hybridisatie heeft het voordeel dat complete monsters (whole-mount) kunnen worden gekleurd voor 3D-lokalisatie11. Echter is het meestal beperkt door een gebrek aan multiplexingscapaciteit voor meer dan 2 doelwitten, tenzij geoptimaliseerde technieken met zeer specifieke toepassingen worden gebruikt, of DNA-hybridisatie wordt toegepast, zoals M-FISH, dat wordt gebruikt voor de fluorescerende labeling van chromosomen12,13.
Immunofluorescentie, voor het eerst ontwikkeld in 1941 door Coons et al.14,15, is een methode voor de detectie van doelwitproteïnen in gefixeerde of ingevroren monsters. Kort gezegd worden monsters geblokkeerd om aspecifieke binding aan niet-doelgebieden van het weefsel te verminderen. Vervolgens wordt een primair antilichaam dat specifiek is voor een doelantigeen met de monsters geïncubeerd. Primaire antilichamen kunnen direct zijn geconjugeerd aan een fluorescerende kleurstof of proteïne, of ze kunnen zelf als doelwit dienen voor een fluorescent geconjugeerd secundair antilichaam dat zich richt op de soort waarin het primaire antilichaam is opgewekt. Het voordeel van het gebruik van secundaire antilichamen boven direct geconjugeerde primaire antilichamen is dat het signaal wordt versterkt, wat leidt tot een hogere gevoeligheid. Meerdere primaire antilichamen opgewekt in verschillende soorten kunnen worden gebruikt voor multiplex-detectie van doelwitmoleculen, door gebruik te maken van direct geconjugeerde of secundaire antilichamen geconjugeerd aan fluorforen met verschillende excitatie- en emissiespectra.
Traditionele technieken zoals RNA in situ hybridisatie en immunofluorescentie zijn beperkt. Meestal staat RNA in situ hybridisatie slechts de detectie van één enkel target in een monster toe, waardoor de interactie tussen verschillende celtypen en pathways zeer beperkt is. Bovendien wordt immunofluorescentie traditioneel uitgevoerd in weefselcoupes in plaats van in whole-mount, wat de ruimtelijke resolutie beperkt tot 2D. Recentere technieken hebben zich gericht op het multiplexen van targetdetectie in 3D-systemen. Optimalisatie van immunofluorescentieprotocollen heeft het mogelijk gemaakt om de techniek in whole-mount toe te passen16. Daarnaast zijn er technieken ontwikkeld om transcriptdetectie te kunnen multiplexen door gebruik te maken van fluorescentielabelled probes, op een vergelijkbare manier als bij immunofluorescentie.
RNAscope werd voor het eerst beschreven in 2012 door Wang et al. Het is gebaseerd op RNA in situ hybridisatietechnologie17, die ruimtelijke identificatie van transcripten in gefixeerde monsters mogelijk maakt. Kort samengevat worden gefixeerde monsters gepermeabiliseerd, waardoor infiltratie van target-sondes mogelijk is die binden aan complementaire transcriptsequenties. RNAscope-sondes hebben een 'double-Z design', bestaande uit een regio die specifiek is voor een regio van 18–25 basenparen van het target-RNA, een staartregio met 14 basenparen en een spacerregio die twee 'Z-sondes' met elkaar verbindt. De twee staartregio's vormen samen een regio van 28bp waaraan een pre-amplifier bindt. Gebonden Z-sondeparen worden vervolgens versterkt door de binding van een reeks amplifiers die binden aan plaatsen op de pre-amplifier. Amplifiers kunnen specifiek worden getarget met behulp van gelabelde sondes voorzien van fluorescente markers of mierikswortelperoxidase (HRP). Het idee achter het double-Z design van de sondes is om amplificatie van ongebonden sondes te voorkomen, waardoor aspecifieke amplificatie wordt verminderd, terwijl het gebruik van meerdere amplifiers bedoeld is om de gevoeligheid te verhogen. Het voordeel van RNAscope ten opzichte van RNA in situhybridisatie is de mogelijkheid om transcriptdetectie te multiplexen in een enkel monster door het gebruik van verschillende fluorescente markers voor elk target. RNAscope is veelvuldig gebruikt in formaline-gefixeerde, in paraffine ingebedde coupes van monsters, waardoor ruimtelijke transcriptdetectie in 2D mogelijk is18. Recentere studies hebben whole-mount RNAscope-kleuring in muisembryo's beschreven, wat 3D-analyse van cruciale ontwikkelingsprocessen mogelijk maakt19.
Hier beschrijven we geoptimaliseerde methoden voor het kleuren van gefixeerde E8.5 en E9.5 muizenembryo's in whole-mount met behulp van zowel RNAscope in situ hybridisatie als immunofluorescentie. Dit protocol beschrijft een herziene methode voor het combineren van immunofluorescentie en RNAscope die succesvol is voor whole-mount E8.5/E9.5 embryo's, waardoor een extra kanaal kan worden toegevoegd aan whole-mount RNAscope-kleuring door het incorporeren van kleuring met een vierde RNAscope-sonde in combinatie met de Opal 780-fluorofoor, en geeft details over een breed toepasbare methode voor de analyse van gekleurde embryo's. Deze methoden kunnen worden gebruikt om de kennis over belangrijke ontwikkelingsprocessen, zoals celmigratie en signaleringspaden, verder te vergroten door multiplexe visualisatie van maximaal 4 eiwit- en transcriptdoelwitten mogelijk te maken via immunofluorescentiekleuring en RNAscope, evenals kwantitatieve 3D-analyse in whole-mount E8.5/E9.5 muizenembryo's tijdens de ontwikkeling.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Alle dierproeven werden uitgevoerd in overeenstemming met de Britse Animals (Scientific Procedures) Act 1986 en zijn goedgekeurd door de commissie voor dierenwelzijn van de Universiteit van Oxford en het Home Office (Projectlicentie PP7967396).
1. Dissectie, dehydratatie en bewaring van muisembryo's in het stadium E8.5 en E9.5
- Euthanaseer drachtige vrouwtjes met een goedgekeurde methode bij een gestatieperiode van E8.5 of E9.5.
OPMERKING: Muizen in deze studie werden geëuthanaseerd via cervicale dislocatie, gevolgd door bevestiging van de dood door exsanguinatie. Exsanguinatie wordt uitgevoerd door een incisie in de ventrikels te maken om bloedingen te vergemakkelijken. Andere methoden, zoals CO2-inhalatie, kunnen worden gebruikt, maar zijn in dit protocol niet getest. - Open eerst de buikholte door door de huid en vervolgens door de buikwand te snijden.
OPMERKING: Veeg de muizen af met 70% ethanol om huidschilfers en bacteriële contaminatie te verminderen. Bij het openen van de buikwand is het belangrijk om de wand van de buikholte weg te trekken en daarna een kleine incisie te maken. Snijd de buikwand in een V-vorm om te voorkomen dat de uterus per ongeluk wordt doorgesneden. - Verwijder de uterus door door te snijden waar de uterus de vagina raakt. Snijd voor beide uterine hoorns de uterus los van het buikvet door kleine incisies te maken totdat de ovaria zijn bereikt.
OPMERKING: Het is raadzaam om de positie van elk embryo in de uterus te noteren. Dissekeer het ovarium samen met de uterus om de oriëntatie te behouden. - Snijd een enkel embryo individueel uit de uterine hoorn, inclusief de omringende uterus, en plaats dit in een schaaltje met 1× Hanks’ Basic Salt Solution met 5mM EDTA.
- Pel met een fijne pincet voorzichtig de uterus weg van het embryo, de placenta en de decidua die deze twee omringen.
- Stel vast waar de placenta aansluit op het deel van de maternale decidua dat het embryo omringt; er zou een licht kleurverschil moeten zijn tussen deze twee secties. Scheid het embryo zorgvuldig door door de maternale decidua te snijden om de placenta los te koppelen en het embryo bloot te leggen.
- Scheid het embryo in zijn dooierzak voorzichtig van het resterende weefsel. Verwijder met een fijne pincet de dooierzak die het embryo omringt. Verwijder het amnion. Tel de somieten om het exacte embryonale stadium te bepalen.
OPMERKING: De dooierzak omringt het embryo en is dikker en ondoorzichtiger. Het amnion is dun, transparant en kleeft strak aan het embryo. Dit moet zorgvuldig worden verwijderd om penetratie van de probe/antilichamen stroomafwaarts te garanderen. Bij oudere embryo's kan met een fijne pincet een gaatje in de kop worden geprikt om te voorkomen dat de probe vast komt te zitten in de ontwikkelende hersenventrikels. Het is op dit punt belangrijk om zoveel mogelijk van de dooierzak te verwijderen. Resterende dooierzak fluoresceert sterk wanneer anti-muis secundaire antilichamen worden gebruikt. - Optioneel: Bewaar de dooierzak voor genotypering in een 1,5 mL Eppendorf-buisje door te wassen in 500 µL PBS of 70% ethanol, afhankelijk van de stroomafwaartse genotypering, om contaminerende bloedresten te verwijderen. Houd de dooierzak in de PBS vast met een fijne pincet en schud handmatig. Plaats de gewassen dooierzak in een schoon 1,5 mL Eppendorf-buisje of genotyperingsplaatje. Bewaar tot 4 weken bij -20 °C of ga over tot de gewenste DNA-extractietechniek.
- Pipetteer het embryo voorzichtig met een 2 mL low-density polyethylene (LDPE) Pasteur-pipet naar een 2 mL rondbodem Eppendorf-buisje met 1 mL vers gemaakte of bevroren stock 4% paraformaldehyde (PFA), waarbij u erop let dat er minimaal dissectiemedium aan de PFA wordt toegevoegd.
OPMERKING: Snijd bij het dissekeren van E9.5-embryo's het uiteinde van de Pasteur-pipet schuin af om de opening te vergroten. Dit is belangrijk om beschadiging van het embryo tijdens het pipetteren te voorkomen. Gebruik van rondbodem 2 mL Eppendorf-buisjes is essentieel om te voorkomen dat het embryo vast komt te zitten in de bodem van de buis en om het herstel te vergemakkelijken. Vermijd herhaalde vries-dooi-cycli van PFA.
WAARSCHUWING: PFA is toxisch en carcinogeen. Gebruik geschikte persoonlijke beschermingsmiddelen (PBM) en inhaleer of slik het niet in. Poeder-PFA is gevaarlijk bij inademing; daarom moet het in een zuurkast worden bereid. - Incubeer het embryo in 4% PFA gedurende 16–24 h bij 4 °C onder voorzichtig schudden, waarbij de buisjes haaks op de schudrichting staan.
- Dehydrateer het embryo door middel van wassingen in een methanolreeks. Verwijder de PFA met LDPE Pasteur-pipetten (pas op dat u het embryo niet mee opzuigt) en voeg 1 mL PBS toe. Was 10 min bij kamertemperatuur (RT) onder voorzichtig schudden, met de buisjes in een hoek van 90° ten opzichte van het schudvlak. Herhaal dit voor wassingen in 25%, 50%, 75% en 2× 100% methanol in PBS.
- Vervang de laatste 100% methanol-wassing door 1,5 mL verse 100% methanol en bewaar bij -20 °C.
OPMERKING: Monsters kunnen jarenlang worden bewaard bij -20 °C. Voorkom verdamping.
WAARSCHUWING: Methanol is brandbaar en toxisch. Draag geschikte PBM en bewaar in een brandveiligheidskast. Inhaleren of inslikken niet toegestaan.
2. Immunofluorescent kleuring van volledige E8.5 en E9.5 embryo's voor eiwitten
OPMERKING: Alle wasstappen worden uitgevoerd met een volume van 1 mL in een Eppendorf-buisje met ronde bodem van 2 mL. Voer de wasstappen van 1 mL uit met voorzichtig schudden, waarbij de buisjes in een hoek van 90° ten opzichte van het schudvlak staan. Verwijder en voeg vloeistof toe met een LDPE Pasteur-pipet van 2 mL, waarbij u er zorg voor draagt dat het embryo niet wordt opgezogen. Bij het gebruik van E9.5-embryo's dient het uiteinde van de Pasteur-pipet te worden afgesneden om beschadiging van het embryo bij onbedoeld pipetteren te voorkomen. Verdun methanol in PBS. Embryo's kunnen individueel worden gekleurd of in een buisje met maximaal 12 samengevoegde embryo's. Voor E9.5-embryo's kunnen maximaal 2 condities in één buisje worden gekleurd. Indien meerdere condities worden gebruikt, snijd dan de staart van één van de groepen af, zodat ze bij beeldvorming van elkaar te onderscheiden zijn.
- Haal de embryo's uit de opslag bij -20 °C en laat ze 10–20 min lang op kamertemperatuur (RT) van 20–26 °C komen. Zorg ervoor dat de embryo's een vergelijkbaar aantal somiten hebben om vergelijking van soortgelijke ontwikkelingsstadia te waarborgen.
- Bleek en permeabiliseer de embryo's gedurende 2 u in een oplossing van 100% methanol: dimethylsulfoxide (DMSO): 30% waterstofperoxide in een verhouding van 4:1:1.
WAARSCHUWING: Waterstofperoxide is corrosief en irriterend. Het kan ernstige oogbeschadiging veroorzaken en is schadelijk bij inslikken. Spoel bij contact met de ogen gedurende enkele minuten met water. Waterstofperoxide vormt een gevaar voor het aquatisch milieu; voer het af bij een erkende afvalverwerkingsinstallatie. Draag geschikte PBM, inclusief oogbescherming. Niet innemen. - Verwarm het warmteblok voor tot 98 °C en bereid de citraat-unmaskingbuffer voor door 100 µL citraat-unmaskingbuffer te verdunnen in 10,7 mL gedestilleerd water.
- Rehydrateer de monsters door ze te spoelen in 70% methanol, gevolgd door wasbeurten in 50% methanol, 25% methanol en vervolgens PBS gedurende elk 10 min bij RT onder schudden.
- Voorverwarm de citraat-unmaskingbuffer tot 98 °C met behulp van het voorverwarmde warmteblok gedurende ten minste 20 minuten. Was de embryo's in citraat-unmaskingbuffer gedurende 3 x 10 min bij RT.
- Voeg na de wasbeurten bij RT voorverwarmde citraat-unmaskingbuffer toe aan de embryo's en verhit deze in het warmteblok bij 98 °C gedurende 10 min. Haal ze van de warmtebron en laat ze ten minste 40 min afkoelen.
OPMERKING: Gebruik geen citraat-unmaskingbuffer voor antigeenherstel in E8.5-embryo's, omdat dit kan leiden tot dissociatie van het embryo. Embryo's kunnen plakkerig worden in citraat-unmaskingbuffer; houd de wasbeurten daarom stationair om beschadiging van de embryo's door klontering te voorkomen. - Was de embryo's 3 × 10 min in PBS + 0,1% Triton-X bij RT onder schudden. Blokkeer de embryo's gedurende 16–24 u in minimaal 150 µL/buis PBS + 0,1% Triton-X + 10% normaal ezelserum bij 4 °C onder schudden.
- Bereid de primaire antilichamen voor door ze 1 u voordat ze op de embryo's worden geplaatst in de aanbevolen concentraties te verdunnen in PBS + 0,1% Triton-X + 10% normaal ezelserum en bewaar deze bij 4 °C.
- Verwijder de blokkeringsoplossing van de embryo's en voeg minimaal 150 µL/buis van de verdunde antilichaamoplossing toe. Incubeer gedurende 1–3 dagen bij 4 °C onder schudden.
OPMERKING: Primaire antilichamen kunnen worden gemultiplexed, mits elk antilichaam in een andere soort is opgewekt. Het gebruik van antilichamen opgewekt in muizen, en aansluitende anti-muis secundaire antilichamen, kan leiden tot sterke aspecifieke kleuring. Alternatief kunnen in sommige gevallen primaire antilichamen van één soort worden gemultiplexed, waarbij de primaire antilichamen van een verschillend isotype zijn en worden gecombineerd met isotype-specifieke secundaire antilichamen. - Spoel de embryo's in PBS + 0,1% Triton-X en was de embryo's 6 × 30 min in PBS + 0,1% Triton-X bij RT.
- Blokkeer het secundaire antilichaam door geschikte fluorescentie-geconjugeerde secundaire antilichamen en DAPI (of een alternatieve kernmarker) 1 u voordat ze op de embryo's worden geplaatst, in de aanbevolen concentraties te verdunnen in 0,1% Triton-X + 10% normaal ezelserum bij 4 °C in het donker.
- Verwijder het wasmiddel en voeg de verdunde secundaire antilichaamoplossing toe aan de embryo's en incubeer gedurende 16–24 u bij 4 °C onder schudden in het donker.
OPMERKING: Wij raden het gebruik van fluorescentie-geconjugeerde secundaire antilichamen met F(ab)-fragmenten aan in plaats van volledige antilichamen. F(ab)-fragmenten zijn kleiner en hebben daarom een betere weefselpenetratie; het ontbreken van de Fc-regio helpt bovendien om aspecifieke achtergrondruis te verminderen. - Spoel de embryo's in PBS + 0,1% Triton-X en was de embryo's vervolgens 6 × 30 min in PBS + 0,1% Triton-X bij RT onder schudden in het donker. Bewaar tot 4 weken in PBS + 0,1% Triton-X bij 4 °C in het donker.
3. Kleuren van hele E8.5 en E9.5 embryo's voor transcripten met behulp van RNAscope
OPMERKING: Alle wasstappen hebben een volume van 1 mL en worden uitgevoerd in een 2 mL Eppendorf-buisje. Voer de wasstappen van 1 mL uit met voorzichtig schudden, waarbij de buisjes in een hoek van 90° ten opzichte van het schudvlak staan. Verwijder en voeg vloeistof toe met een 2 mL LDPE Pasteur-pipet, waarbij u er zorg voor draagt dat het embryo niet wordt opgezogen. Bij gebruik van E9.5-embryo's dient het uiteinde van de Pasteur-pipet te worden afgesneden om beschadiging van het embryo te voorkomen bij onbedoeld pipetteren. Methanol moet worden verdund met PBS. Schakel de hybridisatieoven vóór aanvang in op 40 °C met een stukje vochtig weefsel op de bodem. Embryo's kunnen individueel worden gekleurd of in een buisje met maximaal 12 samengevoegde embryo's. Voor E9.5-embryo's: maximaal 2 condities kunnen in één buisje worden gekleurd. Indien meerdere condities worden gebruikt, knip dan de staart van één van de groepen af, zodat ze bij beeldvorming van elkaar te onderscheiden zijn.
- Bereid de werkbank, pipetten en het rek voor door deze te reinigen met 70% ethanol, gevolgd door een RNase-decontaminatie-oplossing.
- Rehydrateer de embryo's via een gradiënt van methanolseries verdund in PBS van 75%, 50%, 25%, PBS en PBS + 0,1% Tween 20, gedurende 5 min per stap met zacht schudden.
- Permeabiliseer de embryo's door incubatie in ~75 µL (3 druppels) protease III gedurende 20 min bij RT met verticaal schudden.
OPMERKING: De permeabilisatietijd kan worden geoptimaliseerd op basis van het embryonale stadium/de grootte. 20 min werkt goed voor E8.5/E9.5-embryo's, maar langere incubaties kunnen nodig zijn om diepere structuren in E9.5-embryo's zichtbaar te maken. Te lange permeabilisatiestappen kunnen leiden tot dissociatie van het embryo. - Was de embryo's in PBS + 0,01% Tween 20 gedurende 3 × 5 min.
- Bereid de RNAscope-probes voor door ongeveer 150 µL (ongeveer 6 druppels) C1-probes per buisje in een Eppendorf-buisje te plaatsen. Verdun eventuele C2–C4-probes in de C1-probe in een concentratie van 1:50 en incubeer deze verticaal in een hybridisatieoven bij 40 °C gedurende 10 min voordat ze op de embryo's worden aangebracht.
OPMERKING: Voor elke set RNAscope-probes in een experiment geeft 'C' de kanaalaanduiding aan. Een C1-probe is vereist, aangezien alle andere probes in de C1-probe worden verdund. Zorg ervoor dat er slechts één probe van elke kanaalaanduiding in elk mengsel wordt gebruikt. Probemengsels kunnen minimaal 1× worden hergebruikt indien bewaard bij 4 °C voor maximaal 6 weken. - Verwijder de laatste wasstap en voeg 150 µL probemengsel toe aan elk buisje met embryo's. Incubeer verticaal in een hybridisatieoven gedurende 16–24 u bij 40 °C.
- Verwijder het probemengsel en was in 0,2× Saline-Sodium Citrate (SSC) buffer + 0,1% Tween 20 gedurende 3 × 8 min bij RT.
- Post-fixeer de embryo's in 4% PFA bij RT met zacht schudden, waarbij de buisjes in een hoek van 90° ten opzichte van het schudvlak staan.
- Was in 0,2× SSC buffer + 0,1% Tween 20 gedurende 3 × 8 min bij RT.
- Incubeer de monsters in ongeveer 150 µL (6 druppels)/buisje Amp1-reagens gedurende 30 min bij 40 °C in een hybridisatieoven, waarbij de buisjes verticaal worden gehouden.
- Was in 0,2× SSC buffer + 0,1% Tween 20 gedurende 3 × 8 min bij RT.
- Incubeer de monsters in ongeveer 150 µL (6 druppels)/buisje Amp2-reagens gedurende 30 min bij 40 °C in een hybridisatieoven, waarbij de buisjes verticaal worden gehouden.
- Was in 0,2× SSC buffer + 0,1% Tween 20 gedurende 3 × 8 min bij RT.
- Incubeer de monsters in ongeveer 150 µL (6 druppels)/buisje Amp3-reagens gedurende 15 min bij 40 °C in een hybridisatieoven, waarbij de buisjes verticaal worden gehouden.
- Was in 0,2× SSC buffer + 0,1% Tween 20 gedurende 3 × 8 min bij RT.
- Incubeer in 150 µL (6 druppels) HRP-C1 gedurende 15 min bij 40 °C verticaal in een hybridisatieoven. Was in 0,2× SSC buffer + 0,1% Tween 20 gedurende 3 × 8 min bij RT.
- Incubeer de monsters met een fluorofoor verdund in TSA-buffer gedurende 30 min bij 40 °C in een hybridisatieoven, waarbij de buisjes verticaal worden gehouden.
OPMERKING: RNAscope-fluoroforen kunnen worden gebruikt op verschillende probes. TSA-vivid 570 is het helderst, gevolgd door TSA-vivid 650 en TSA-vivid 520. Selecteer fluoroforen op basis van de verwachte probe-abundantie. - Was in 0,2× SSC buffer + 0,1% Tween 20 gedurende 3 × 8 min bij RT.
- Incubeer de monsters in het donker in ongeveer 150 µL (6 druppels)/buisje HRP-blocker reagens gedurende 15 min bij 40 °C in een hybridisatieoven, waarbij de buisjes verticaal worden gehouden.
- Was in 0,2× SSC buffer + 0,1% Tween 20 gedurende 3 × 8 min bij RT.
OPMERKING: Het protocol kan hier 16–24 u worden gepauzeerd door de embryo's in de laatste wasstap bij RT te laten. - Herhaal stappen 3.16–3.20 voor elk van de probes C2–C4 indien deze worden gebruikt, waarbij HRP-C1 wordt vervangen door HRP C2/C3/C4 indien nodig. Gebruik een andere fluorofoor voor elke afzonderlijke probe.
OPMERKING: Bij gebruik van C4-probes zijn de RNAscope 4-plex ancillary kit en de Opal 780 fluorofoor vereist. Opal 780 moet alleen worden gebruikt wanneer multiplexing van 4-probes nodig is en moet de laatste gebruikte fluorofoor zijn, omdat deze gevoelig is voor degradatie. Bij het selecteren van fluoroforen is het belangrijk om rekening te houden met de mogelijkheden van het microscopieplatform dat u gebruikt. Controleer altijd of het beeldsysteem over de juiste excitatiegolflengten, emissiefiltering en detectorgevoeligheid beschikt voor alle gebruikte probes. Vervang bij kleuring met Opal 780 de stappen 3.17–3.19 door het volgende:- Incubeer de monsters in 150 µL/buisje TSA-DIG (1:100 verdund in TSA-buffer) gedurende 30 min bij RT met zacht schudden.
- Was in 0,2× SSC buffer + 0,1% Tween 20 gedurende 3 × 8 min bij RT.
- Incubeer de monsters in het donker in ongeveer 150 µL (6 druppels)/buisje HRP-blocker reagens gedurende 15 min bij 40° in een hybridisatieoven, waarbij de buisjes verticaal worden gehouden.
- Was in 0,2× SSC buffer + 0,1% Tween 20 gedurende 3 × 8 min bij RT.
- Incubeer de monsters in 150 µL/buisje Opal Polaris 780 verdund in Antibody Diluent/Block gedurende 45 min bij 40 °C in een hybridisatieoven, waarbij de buisjes verticaal worden gehouden
- Incubeer de monsters in het donker in ongeveer 150 µL DAPI verdund in 0,2 x SSC buffer + 0,1% Tween 20 (werkconcentratie 1µg/mL) gedurende 16–24 u bij 4 °C met zacht schudden, waarbij de buisjes verticaal worden gehouden
- Was in 0,2× SSC buffer + 0,1% Tween 20 gedurende 3 × 8 min bij RT. Bewaar de monsters kortstondig in PBS bij 4 °C.
4. Gecombineerde RNAscope- en immunofluorescentiekleuring in whole-mount E8.5-embryo's
- Volg stappen 3.1–3.21 van het RNAscope-protocol.
OPMERKING: Het verkorten van de tijd van de RNAscope-permeabilisatiestap kan helpen bij het verbeteren van de antibody-prestaties bij immunofluorescentie. - Was de monsters gedurende 16–24 u in 1 mL 0,2× SSC-buffer + 0,1% Tween 20 bij RT onder schudden.
- Volg stappen 2.7–2.12 van het immunofluorescentie-protocol.
5. Voorbereiden van hele embryo's voor beeldvorming met behulp van point-scanning of spinning-disk confocale microscopie
- Pipetteer na de kleuring het embryo voorzichtig op met een LDPE Pasteurpipet en breng het embryo over naar een multi-well imaging slide of een cavity slide, waarbij u er zorg voor draagt dat het embryo niet uitdroogt. Indien nodig kunt u het embryo naar de gewenste positie oriënteren, maar let erop dat het monster niet beschadigd raakt.
OPMERKING: Cavity slides zijn gunstig voor het waarborgen van de oriëntatie van embryo's, maar kunnen leiden tot compressie van het embryo en weefselschade. Multi-well imaging slides zijn milder voor embryo's, maar kunnen leiden tot variatie in de beeldvormingsoriëntatie en kunnen artefacten aan de rand van de well veroorzaken. - Optioneel – Weefselklaring: Klaar de weefsels door de laatste wasstap voorzichtig van het embryo te verwijderen en tot 200 µL CUBIC-R-oplossing in het imaging dish bij RT toe te voegen. Houd het embryo gedurende minimaal 40 min in een enkele incubatie met CUBIC-R vóór de beeldvorming. Geklaarde monsters moeten worden afgebeeld in dezelfde CUBIC-R-oplossing die is gebruikt voor de incubatie.
WAARSCHUWING: CUBIC-R is giftig bij inademing en kan leiden tot oog- en huidirritatie. Vermijd inademing en gebruik geschikte PBM bij het hanteren.
OPMERKING: Embryo's worden kort na blootstelling aan CUBIC-R volledig transparant. Voeg CUBIC-R pas direct toe aan het imaging dish na het oriënteren en zorg dat u het embryo niet verliest. Gedeeltelijke omkeer van de klaring vindt plaats als CUBIC-R van het embryo wordt verwijderd en wordt vervangen door PBS. - Indien er geen weefselklaring wordt uitgevoerd, vul de wells dan aan met PBS om te voorkomen dat de embryo's te droog worden. Gebruik bij een cavity slide een #1.5 dekglas om de slide af te dekken. Plaats een deksel op de multi-chamber imaging slide.
OPMERKING: Embryo's kunnen worden afgebeeld met een breed scala aan lichtmicroscopen. Vanwege de dikte van het monster is het relevant om een microscoop te selecteren die op een passende diepte kan beelden. Kies een objectief dat geschikt is voor de gewenste structuur. Een 10x objectief met een lage numerieke apertuur geeft een goed overzicht van de kleuring van het gehele embryo, maar een objectief met een hogere vergroting en numerieke apertuur kan nodig zijn om kleinere of dieper gelegen structuren met een hoge resolutie waar te nemen. Embryo's kunnen soms bewegen in het imaging dish, wat fouten introduceert, dus het is belangrijk om de beeldvormingstijd waar mogelijk te beperken.
6. Analyse van kernen voor tellingen en signaalintensiteit
OPMERKING: Dit protocol behandelt de analyse van kernen met Zeiss Arivis Pro; soortgelijke analyses kunnen mogelijk worden uitgevoerd met alternatieve programma's voor beeldanalyse. Het werkt het beste bij monsters die nucleair zijn, zoals transcripten of kernproteïnen. Bij het analyseren van niet-nucleaire proteïnen kan het nuttig zijn om een kleuring te gebruiken om de celstructuur te visualiseren, bijvoorbeeld CellMask, dat celmembranen kleurt, om zo de expressie van markers binnen de gehele cel te onderzoeken.
- Zet imagingbestanden om naar het SIS-formaat met behulp van de Zeiss Arivis SIS-converter. Open de converter en selecteer 'Add files' en vervolgens 'Browse folder'. Selecteer de bronmap van de afbeeldingen. Selecteer 1-op-1 conversie. Kies de outputmap en selecteer 'start conversion'.
- Importeer SIS-bestanden in Zeiss Arivis Pro door 'bestand' te selecteren, vervolgens 'openen' en daarna het gewenste SIS-bestand te selecteren.
- Bereid de gegevens voor op pipeline-analyse door de afbeeldingen te roteren. Selecteer hiervoor 'Data' en vervolgens 'Transformation gallery'. Selecteer de functie 'rotation' en roteer het embryo zodig dat het interessegebied kan worden uitgelijnd in een star rechthoekig kader.
- Snijd interessegebieden uit door 'Data' en vervolgens 'Transformation gallery' te selecteren en daarna de optie 'Crop' te kiezen. Sleep de randen om het interessegebied uit te snijden en selecteer 'Ok'.
OPMERKING: Snijd bij de hoofregio in E8.5-embryo's het gebied bij tot het hoofd, waarbij de afbeelding wordt afgesneden bij de inkeping nabij de otische vesikel. Snijd bij de hartregio van E8.5-embryo's vanaf onder de inkeping nabij de otische vesikel tot aan de onderkant van de hartbuis. Snijd bij het bijsnijden van geroteerde afbeeldingen de zwarte regio's weg die als artefact van de rotatie zijn ontstaan. - Start een nieuwe pipeline door 'Analysis' en vervolgens 'Analysis Panel' te selecteren. Selecteer 'new pipeline'.
- ROI invoeren: Stel de ROI in op 'current image set', stel de kanalen in op 'All channels' en de schaling op '100%'. Zorg dat 'include Z' is geselecteerd.
OPMERKING: Afbeeldingen kunnen worden geschaald (bijv. naar 50%) als ze te groot zijn of de verwerking te traag verloopt; dit zal de resolutie van de afbeeldingen verminderen. - Zoek kernen (marker #1) met behulp van de tool 'blob finder': Selecteer 'Add Operation' en zoek vervolgens naar 'Blob finder'. Selecteer bij 'channel' het kanaal dat de kernmarker bevat. Stel de diameter in op 6 µm en optimaliseer de waarschijnlijkheidsdrempel op basis van de kleuringsintensiteit. Kernen in het vlak moeten worden gedetecteerd met een adequate scheiding tussen de kernen. Stel de splitsingsgevoeligheid in. 55% is een redelijke waarde voor de meeste monsters. Stel 'Normalisatie' in op het eerste tijdstip. Stel de uitvoernaam in, bijv. Blob finder (nuclei). Gedetecteerde objecten kunnen worden gevisualiseerd door het 'oog'-icoon in de bovenste balk van de bewerking te selecteren.
- Bepaal de expressie van marker #2 met behulp van de blob finder-tool: selecteer ‘Add Operation’ en zoek vervolgens naar ‘Blob finder’. Selecteer bij 'channel' het kanaal dat de kernmarker bevat. Stel de diameter in op 6 µm en optimaliseer de kansdrempel op basis van de kleuringsintensiteit. 'Blobs' die positief zijn voor marker #2 in het vlak moeten met een passende scheiding worden gedetecteerd. Stel de splitsingsgevoeligheid (split sensitivity) in. 55% is een redelijke waarde voor de meeste monsters. Stel 'Normalisatie' in op het eerste tijdstip. Stel de outputnaam in, bijv. Blob finder (kanaal 2). Gedetecteerde objecten kunnen worden gevisualiseerd door het 'oog'-icoon in de bovenbalk van de bewerking te selecteren.
- Bepaal de expressie van marker #3 met de blob finder-tool: Selecteer 'Add Operation' en zoek vervolgens naar 'Blob finder'. Selecteer bij het kanaal het kanaal dat de kernmarker bevat. Stel de diameter in op 6 µm en optimaliseer de drempelwaarde voor de waarschijnlijkheid op basis van de kleuringsintensiteit. 'Blobs' die positief zijn voor marker #3 in het vlak moeten met een passende scheiding worden gedetecteerd. Stel de splitsgevoeligheid in. 55% is een redelijke waarde voor de meeste monsters. Stel 'Normalisatie' in op µ first-tijdspunt. Stel de outputnaam in, bijvoorbeeld Blob finder (kanaal 3). Gedetecteerde objecten kunnen worden gevisualiseerd door op het 'oog'-icoon in de bovenste balk van de bewerking te klikken.
- Optioneel: volumefilter – Als er veel debris zichtbaar is in de beeldvorming, kan een volumefilter worden gebruikt om artefacten te verwijderen. Selecteer 'Add Operation' en zoek vervolgens naar 'Object Feature Filter'. Stel de input in op Blob finder (nuclei) (of een andere setnaam uit stap 6.7). Stel 'is type' in op 'any'. Selecteer in het vervolgkeuzemenu Volume (volume) en stel de waarde in op > 6 µm3Selecteer 'Voeg filter toe'. Selecteer in het vervolgkeuzemenu Volume (volume) en stel de waarde in op <3000 µm3Geef de output een naam, bijvoorbeeld 'nuclei'. Voer de pijplijn tot dit punt uit door op de knop met de 3 lijntjes in de module te klikken en 'run pipeline to here' te selecteren.
OPMERKING: Volumefilters kunnen indien nodig ook voor de andere kanalen worden gebruikt. Optimaliseer de waarden voor 'groter dan' en 'kleiner dan' om er zeker van te zijn dat alle positieve objecten worden geselecteerd, terwijl debris wordt weggelaten. - Om kernen te identificeren die positief zijn voor een andere marker, gebruikt u de intersect-tool. Selecteer 'Add operation' en zoek de tool 'compartments'. Voeg in het eerste vervolgkeuzemenu de output van de kernen toe (bijv. blob finder (nuclei) of de volume-gefilterde 'nuclei') en zorg dat de knop links van het vak is geselecteerd. Selecteer in het tweede vervolgkeuzemenu het gewenste kanaal (bijv. blob finder (channel 2)). Geef de output een naam, bijv. 'nuclei with channel 2'. Herhaal dit voor alle gewenste markers.
- Om kernen te vinden die positief zijn voor 2 of meer andere markers, selecteert u 'Add operation' en zoekt u het hulpmiddel 'Object Feature Filter'. Stel de input in op de marker voor kernen (bijv. 'nuclei', type= any) en voeg de filters uit de vorige stap toe na 'Has tag', bijv. 'Nuclei with channel 2' en 'Nuclei with channel 3'. Geef de output een naam, bijv. 'Nuclei with channel 2 and channel 3'. Voer de pipeline tot dit punt uit.
- Maak aangepaste kenmerken om kernen te tellen door op het pictogram van de datatabel in de bovenste balk te klikken, ‘create’ te selecteren en vervolgens ‘object count’ te kiezen. Geef het kenmerk een passende naam (bijv. nuclei count) en selecteer in het tag-menu de gewenste output die gekwantificeerd moet worden (bijv. nuclei). Herhaal deze stap voor elke groep die gekwantificeerd moet worden.
- Maak objectgroepen aan door 'Add operation' en vervolgens 'Create object groups' te selecteren. Selecteer in de inputs elke groep die in de analyses moet worden gebruikt. Label de outputs als 'Create object groups'. Voer de pipeline tot hier uit.
- Exporteer de samenvattende aantallen door 'Add operation' en vervolgens 'Export object features' te selecteren. Selecteer bij de inputs 'create object groups'. Selecteer een map om de gegevens op te slaan. De modus is 'single table'. Klik op features en selecteer de aangepaste features die in stap 6.13 zijn gemaakt.
- Exporteer de details van de kernen door 'Add operation' en vervolgens 'Export object features' te selecteren. Selecteer bij de inputs de nuclei-detectie die is aangemaakt in stap 6.7 (of 6.10 bij gebruik van een volumefilter). Selecteer een map om de gegevens op te slaan. De modus is 'single table'. Klik op features en selecteer 'intensities' voor elk kanaal (#1, #2, #3, etc.) en andere gewenste kenmerken om te exporteren, bijvoorbeeld volume (volume).
- Sla objecten op door de objecten die nodig zijn voor visualisatie/analyse in het vak 'store objects' te selecteren.
- Sla de pipeline op door alle stappen terug te draaien, de drie lijnen rechtsboven te selecteren en op 'Export' te klikken. Selecteer de map waarin de 'pipeline' moet worden opgeslagen en sla deze op.
- Om een pipeline in batch uit te voeren, start Arivis opnieuw op. Selecteer in de bovenste balk 'Analysis' en vervolgens 'Batch analysis'. Selecteer in het venster de pipeline die in stap 6.18 is opgeslagen. Selecteer bij 'files' de bestanden voor analyse en klik op ok. Zodra deze zijn geladen, kunnen ongewenste weergaven worden verwijderd. Selecteer 'Ok'. Selecteer in het volgende scherm de directory om de gegevens op te slaan. Klik op 'Run'. De gegevens worden automatisch opgeslagen in de geselecteerde outputmap.
Een overzicht van de workflow wordt getoond in Figuur 1.
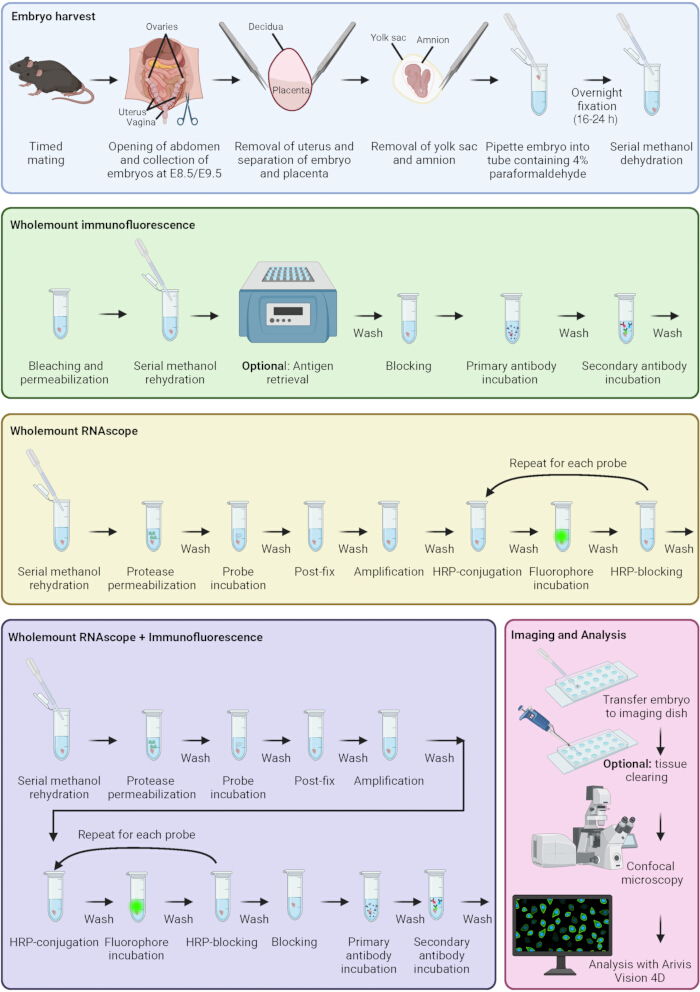
Figuur 1: Protocol voor immunofluorescentie en RNAscope-kleuring. Schema dat de belangrijkste fasen van embryo-oogst, immunofluorescentie, RNAscope, gecombineerde immunofluorescentie en RNAscope, monsterbeeldvorming en analyse weergeeft. Gekleurde kaders corresponderen met verschillende fasen van het protocol. Gemaakt in BioRender. Sparrow, D. (2026) https://BioRender.com/q6rmax8 Klik hier om een grotere versie van deze figuur te bekijken.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
E8.5 embryo's werden volgens dit protocol gekleurd met immunofluorescentie om het aantal migrerende neurale kamcellen te analyseren die zich in de G2/M-fase van de celcyclus bevonden. De monsters werden gekleurd met antilichamen gericht tegen PHH3 om de G2/M-fase van de celcyclus te visualiseren en SOX10 om migrerende neurale kamcellen te visualiseren. De embryo's werden verder gekleurd met geschikte secundaire antilichamen. Kernen werden gekleurd met DAPI. De monsters werden gefotografeerd met de Olympus SpinSR spinning...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Hier beschrijven we een geoptimaliseerde methode voor het ruimtelijk analyseren van gen- en eiwitexpressie in hele E8.5- en E9.5-embryo's. Deze methoden bieden een verbeterde ruimtelijke resolutie en multiplexing-capaciteit in vergelijking met traditionele methoden van RNA in situ hybridisatie en immunofluorescentie van coupes. Dit protocol bouwt voort op recente bestaande protocollen om ontwikkelingspaden in muizembryo's te onderzoeken. Een recent protocol maakte gebruik van RNAscope en immunofluorescentiekleur...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs verklaren dat er geen concurrerende financiële belangen zijn.
Dankbetuigingen
De auteurs danken het team van de Cellular Imaging Core facility, Centre for Human Genetics, University of Oxford, voor de technische ondersteuning bij de microscopie en beeldanalyse in dit manuscript. De auteurs danken het personeel van Biomedical Services, University of Oxford, voor de ondersteuning bij het dierenbeheer en de getimede paringen om embryo's te genereren.
De financiering voor dit onderzoek werd verstrekt door British Heart Foundation Senior Fellowship FS/SBSRF/22/31022 (DBS), Additional Ventures Single Ventricle Fund (DBS), het John Fell Fund, University of Oxford 0016065 (VSR), en het Medical Sciences Internal Fund, University of Oxford 0016707 (VSR).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Plasticware/glaswerk | |||
| 3ml Pasteurpipetten Low-density Polyethyleen (LDPE) gegradueerd | Wheaton | 711116 | |
| Eppendorf Safe-lock buisjes 1.5ml microbuisje | Eppendorf | 0030 120.086 | |
| Ibidi µ-slide 18-well | Ibidi | 81817 | #1.5H glazen dekglas, onbehandeld |
| Menzel X1000 Dekglas 22x50 mm #1.5 (0.16-0.19mm) | Thermo Scientific | 17284904 | |
| Microscoopglasplaatjes met holtes | Marienfeld Superior | 1320000 | |
| Safe seal microbuisje 2ml | Sarstedt | 72.695.500 | 2ml 'Eppendorf' buisje, ronde bodem |
| Oplossingen/buffers | |||
| 1x Antilichaam verdunnings-/blokkeermiddel | Akoya Biosciences | ARD1001EA | |
| Ambion™ RnaseZap™ Rnase Decontaminatie-oplossing | Ambion | 9780.9782 | |
| Citraat-unmasking buffer | Vector labs | H-3300 | Gelabeld als Antigen unmasking solution, op basis van citroenzuur |
| Dimethylsulfoxide (DMSO) | Merck (Sigma-Aldrich) | D8418 | |
| Hanks' Balanced Salt Solution 10x | Merck (Sigma-Aldrich) | H4641 | |
| Waterstofperoxide-oplossing | Merck (Sigma-Aldrich) | H1009 | 30% (w/w) in H2O |
| Methanol | Merck (Sigma-Aldrich) | 32213-2.5L-M | |
| Normaal ezelsserum | Abcam | Ab7475 | 100% voorraadconcentratie, 10% eindconcentratie |
| Paraformaldehyde (PFA) poeder | Merck (Sigma-Aldrich) | 158127-500g | Verdunnen tot 4% in water. Bereiden in zuurkast. Roeren op verwarmd blok en een kleine hoeveelheid NaOH toevoegen om het oplossen te vergemakkelijken. pH 7.2-7.6 |
| Fosfaatgebufferde zoutoplossing (PBS) | Merck (Sigma-Aldrich) | P4417 | 1 tablet per 200ml gedestilleerd water |
| RNAscope 4-Plex Ancillary Kit voor Multiplex Fluorescent Reagent Kit v2 | ACD (Bio-Techne) | 323120 | Bevat HRP-C4 en HRP-blokkeermiddel |
| RNAscope™ Multiplex Fluorescent Detection Kit v2 | ACD (Bio-Techne) | 323110 | Bevat Protease Plus, Protease III, Protease IV, waterstofperoxide, TSA-buffer, Amp1/2/3, Hrp-C1/2/3, HRP-blokkeermiddel en DAPI |
| Saline-Sodium-Citrate (SSC) buffer 20X oplossing | Fisher Bioreagents | BP-1325-1 | Verdunnen tot 0.2x in gedestilleerd water |
| Weefsel-clearing reagent Cubic-R+(M) [voor dieren] | Tokyo Chemical Industry | T3741 | |
| Triton™ X 100 | Merck (Sigma-Aldrich) | X100 | |
| Tween® 20 | Merck (Sigma-Aldrich) | P7949 | |
| Ultrapure™ 0.5M EDTA, pH8 | Invitrogen | 15575020 | |
| Primaire antilichamen | |||
| Endomucine antilichaam (V.7C7) | Santa Cruz | SC-65495 | Gebruik 1:50 verdunning. |
| Islet 1 en Islet 2 antilichaam | Developmental Studies Hybridioma Bank | 34.4DS-5 | 50% verdunnen in glycerol. Gebruik 1:50 verdunning. |
| PCNA (PC10) Muis Monoklonaal antilichaam | Cell Signaling Technology | 2586S | Gebruik 1:500 verdunning |
| P-histone H3 (Ser10) (6G3) Muis Monoklonaal antilichaam | Cell Signaling Technology | 9706S | Gebruik 1:500 verdunning |
| P-histone H3 (Ser10) (D7N8E) XP® Konijn Monoklonaal antilichaam | Cell Signaling Technology | 53348S | Gebruik 1:500 verdunning |
| Sox10 (E6B6I) XP® Konijn Monoklonaal Antilichaam | Cell Signaling Technology | 69661S | Gebruik 1:500 verdunning |
| Secundaire antilichamen/kernkleuringen | |||
| AlexaFluor® 488-geconjugeerd Affinipure® Ezel anti-muis IgG (H+L) | Jackson Immunoresearch | 715-545-151 | Gebruik 1:500 verdunning |
| AlexaFluor® 647-geconjugeerd Affinipure® Ezel anti-rat IgG (H+L) | Jackson Immunoresearch | 712-605-153 | Gebruik 1:500 verdunning |
| AlexaFluor® 647-geconjugeerd Affinipure® F(ab')2 Fragment Ezel anti-muis IgG (H+L) | Jackson Immunoresearch | 715-606-150 | Gebruik 1:500 verdunning |
| Cy™3 Affinipure® Ezel anti-Konijn IgG (H+L) | Jackson Immunoresearch | 711-165-152 | Gebruik 1:500 verdunning |
| DAPI | Merck (Sigma-Aldrich) | D9542 | Gebruikt bij 1 µg/ml |
| RNAscope probes | |||
| RNAscope® Probe - Mm Sp5-C4 | ACD (Bio-Techne) | 405681-C4 | C4 probe |
| RNAscope® Probe - Mm-Dlx2-C3 | ACD (Bio-Techne) | 555951-C3 | C3 probe |
| RNAscope® Probe - Mm-Msx1 | ACD (Bio-Techne) | 421841 | C1 probe |
| RNAscope® Probe - Mm-Sox10-C2 | ACD (Bio-Techne) | 435931-C2 | C2 probe |
| RNAscope fluorforen | |||
| Opal 780 Reagent Pack | Akoya Biosciences | FP1501001KT | Bevat Opal 780 reagent, Opal TSA-DIG, DMSO |
| TSA-vivid™ fluorfoor 520 | ACD (Bio-Techne) | 323271 | nu ClariTSA™ fluorfoor 520 |
| TSA-vivid™ fluorfoor 570 | ACD (Bio-Techne) | 323272 | nu ClariTSA™ fluorfoor 570 |
| TSA-vivid™ fluorfoor 650 | ACD (Bio-Techne) | 323273 | nu ClariTSA™ fluorfoor 650 |
| Apparatuur/software | |||
| Fluoview FV4000 laser-scanning microscoop | Evident | fv4000 | Excitatielasers: 405/488/561/640/730 nm. Gedetecteerde golflengte (Fig. 3): 430-470, 500-540, 570-620, 650-710, 750-850 nm. Gedetecteerde golflengte (Fig. 4) 430-470, 500-531, 570-620 nm. |
| Graphpad Prism 10 | Graphpad | v10.6.1 | |
| Verwarmingsblok | Grant | QBT1 | |
| Hybrigene hybridisatieoven | Techne (Bibby Scientific) | FHB4DD | |
| Ixplore IX83 SpinSR Super-Resolution Microscoopsysteem | Olympus | ixplore-ix83-spinsr | Excitatielasers: 405/488/561/640 nm. Emissiefilters: 447/60, 525/50, 617/73, 685/40. |
| Zeiss Arivis Pro | Carl Zeiss Microscopy GmbH | v. 4.5 (voorheen Arivis Vision 4D) | |
| Zeiss Arivis SIS converter | Carl Zeiss Microscopy GmbH | v. 4.3.0 |
Referenties
- Bruter AV, Varlamova EA, Okulova YD, Tatarskiy VV, Silaeva YY, Filatov MA. Genetically modified mice as a tool for the study of human diseases. Mol Biol Rep. 2024;51(1):135.
- Rashbrook VS, Brash JT, Ruhrberg C. Cre toxicity in mouse models of cardiovascular physiology and disease. Nat Cardiovasc Res. 2022;1:806–16.
- Breschi A, Gingeras TR, Guigo R. Comparative transcriptomics in human and mouse. Nat Rev Genet. 2017;18(7):425–40.
- Mole MA, Weberling A, Zernicka-Goetz M. Comparative analysis of human and mouse development: From zygote to pre-gastrulation. Curr Top Dev Biol. 2020;136:113–38.
- Krishnan A, Samtani R, Dhanantwari P, Lee E, Yamada S, Shiota K, et al. A detailed comparison of mouse and human cardiac development. Pediatr Res. 2014;76(6):500–7.
- Anderson RH, Bamforth SD. Morphogenesis of the Mammalian Aortic Arch Arteries. Front Cell Dev Biol. 2022;10:892900.
- Wessels A, Sedmera D. Developmental anatomy of the heart: a tale of mice and man. Physiol Genomics. 2003;15(3):165–76.
- Gall JG, Pardue ML. Formation and detection of RNA-DNA hybrid molecules in cytological preparations. Proc Natl Acad Sci U S A. 1969;63(2):378–83.
- John HA, Birnstiel ML, Jones KW. RNA-DNA hybrids at the cytological level. Nature. 1969;223(5206):582–7.
- Buongiorno-Nardelli M, Amaldi F. Autoradiographic detection of molecular hybrids between RNA and DNA in tissue sections. Nature. 1970;225(5236):946–8.
- Dakou E, Vanbekbergen N, Corradi S, Kemp CR, Willems E, Leyns L. Whole-mount in situ hybridization (WISH) optimized for gene expression analysis in mouse embryos and embryoid bodies. Methods Mol Biol. 2014;1211:27–40.
- Anderson R. Multiplex fluorescence in situ hybridization (M-FISH). Methods Mol Biol. 2010;659:83–97.
- Kearney L. Multiplex-FISH (M-FISH): technique, developments and applications. Cytogenet Genome Res. 2006;114(3-4):189–98.
- Burnett R, Guichard Y, Barale E. Immunohistochemistry for light microscopy in safety evaluation of therapeutic agents: an overview. Toxicology. 1997;119(1):83–93.
- Coons AH, Creech HJ, Jones RN. Immunological properties of an antibody containing a fluorescent group. P Soc Exp Biol Med. 1941;47(2):200–2.
- Bardot E, Tzavaras N, Benson DL, Dubois NC. Quantitative Whole-mount Immunofluorescence Analysis of Cardiac Progenitor Populations in Mouse Embryos. J Vis Exp. 2017(128).
- Wang F, Flanagan J, Su N, Wang LC, Bui S, Nielson A, et al. RNAscope: a novel in situ RNA analysis platform for formalin-fixed, paraffin-embedded tissues. J Mol Diagn. 2012;14(1):22–9.
- Erben L, Buonanno A. Detection and Quantification of Multiple RNA Sequences Using Emerging Ultrasensitive Fluorescent In Situ Hybridization Techniques. Curr Protoc Neurosci. 2019;87(1):e63.
- De Bono C, Lescroart F, Zaffran S. How to Study Gene Expression and Gain of Function of Hoxb1 in Mouse Heart Development. Methods Mol Biol. 2025;2889:121–37.
- Zhao R, Moore EL, Gogol MM, Unruh JR, Yu Z, Scott AR, et al. Identification and characterization of intermediate states in mammalian neural crest cell epithelial to mesenchymal transition and delamination. Elife. 2024;13.
- Guijarro C, Kelly RG. On the involvement of the second heart field in congenital heart defects. C R Biol. 2024;347:9–18.
- Bradshaw L, Chaudhry B, Hildreth V, Webb S, Henderson DJ. Dual role for neural crest cells during outflow tract septation in the neural crest-deficient mutant Splotch(2H). J Anat. 2009;214(2):245–57.
- Zawada D, Kornherr J, Meier AB, Santamaria G, Dorn T, Nowak-Imialek M, et al. Retinoic acid signaling modulation guides in vitro specification of human heart field-specific progenitor pools. Nat Commun. 2023;14(1):1722.
- Rabadan MA, Herrera A, Fanlo L, Usieto S, Carmona-Fontaine C, Barriga EH, et al. Delamination of neural crest cells requires transient and reversible Wnt inhibition mediated by Dact1/2. Development. 2016;143(12):2194–205.
- Bhattacharya D, Rothstein M, Azambuja AP, Simoes-Costa M. Control of neural crest multipotency by Wnt signaling and the Lin28/let-7 axis. Elife. 2018;7.
- Kishimoto K, Furukawa KT, Luz-Madrigal A, Yamaoka A, Matsuoka C, Habu M, et al. Bidirectional Wnt signaling between endoderm and mesoderm confers tracheal identity in mouse and human cells. Nat Commun. 2020;11(1):4159.
- De Bono C, Liu Y, Ferrena A, Valentine A, Zheng D, Morrow BE. Single-cell transcriptomics uncovers a non-autonomous Tbx1-dependent genetic program controlling cardiac neural crest cell development. Nat Commun. 2023;14(1):1551.
- Hazra R, Spector DL. Simultaneous visualization of RNA transcripts and proteins in whole-mount mouse preimplantation embryos using single-molecule fluorescence in situ hybridization and immunofluorescence microscopy. Front Cell Dev Biol. 2022;10:986261.
- Kann AP, Krauss RS. Multiplexed RNAscope and immunofluorescence on whole-mount skeletal myofibers and their associated stem cells. Development. 2019;146(20).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar