Dit werk presenteert een protocol voor het verkrijgen van gekloonde embryo's van een bedreigde hertensoort met behulp van enucleerde oocyten van rundvee. Hierin beschrijven we de gedetailleerde methodologie van interspecifieke somatische celkernoverdracht en het gebruik van oocyten zonder zona pellucida als cytoplasten. Daarnaast worden de behaalde resultaten uitgebreid besproken.
Methodenartikel
Interspecifieke somatische celkernoverdracht met behulp van zona pellucida-vrije oocyten van rund (Bos taurus) en fibroblasten van hert (Mazama americana)
In dit artikel
Samenvatting
Samenvatting
Reproductieve biotechnologieën bij dieren maken het mogelijk om populaties van soorten met een hoge genetische waarde te vergroten. Bovendien ondersteunen deze technologieën de conservatie, preservering en verspreiding van genetisch materiaal van individuen met superieure kenmerken. De genetische redding van geselecteerde individuen heeft geleid tot talloze studies bij gedomesticeerde soorten, met als doel de bevindingen te extrapoleren naar andere dierpopulaties of specifieke individuen. Een van deze benaderingen is het gebruik van somatische celkernoverdracht (SCNT), of klonen, dat wordt gebruikt om embryo's te produceren met genetisch materiaal dat identiek is aan dat van een bestaar specimen. Een van de beperkingen van deze techniek is de beperkte beschikbaarheid van oocyten van wilde dieren. Daarom is als alternatief interspecifieke somatische celkernoverdracht (iSCNT) ontstaan, waarbij een somatische cel (karyoplast) van de te klonen soort als kern donor wordt gebruikt en wordt ingebracht in een enucleerde oocyt (cytoplast) verkregen uit een soort die behoort tot een andere orde of taxon. Deze aanpak maakt het mogelijk om levensvatbare gekloonde embryo's te verkrijgen. In Brazilië komen negen hertensoorten voor, waarvan vele bedreigd zijn door ongecontroleerde jacht, habitatverlies en andere oorzaken. Het rode bokhert (Mazama americana) is een van de soorten die onder deze omstandigheden lijden. Daarom presenteert dit werk een methodologie voor het verkrijgen van gekloonde embryo's van het rode bokhert met behulp van de iSCNT-techniek, om een embryo-bank op te richten voor latere overdracht naar recipiënte vrouwtjes en zo bij te dragen aan het overleven van de soort.
Inleiding
De familie Cervidae omvat momenteel 55 soorten hoefzoogdieren met echte gewei-structuren – benige structuren aan de bovenzijde van de schedels van mannetjes, met uitzondering van het rendier (Rangifer tarandus), waarbij beide geslachten deze bezitten1, en het Chinees waterschaap (Hydropotes inermis), waarbij geen van beide geslachten deze bezitten2. Cerviden behoren tot de orde Cetartiodactyla, waartoe ook de families van gaffelherten, runderachtigen, varkens, pekkari's, kamelen, okapi's, giraffen en nijlpaarden behoren. In het algemeen zijn cerviden herbivore herkauwers die in een grote verscheidenheid aan habitats over de hele wereld voorkomen, met uitzondering van het Antarctische continent3.
Negen soorten behorend tot de familie Cervidae worden momenteel erkend in Brazilië: Odocoileus virginianus (witstaartzwart), Blastocerus dichotomus (moerashert), Ozotoceros bezoarticus (pampashert), Mazama americana, Mazama rufa, Mazama jucunda, Mazama nana, Subulo gouazoubira en Passalites nemorivagus4.
Deze taxonomie weerspiegelt recente moleculaire studies waaruit blijkt dat het geslacht Mazama polyfyletisch is5, wat leidde tot de erkenning van Subulo6 en Passalites7 als afzonderlijke geldige geslachten. Veel van deze neotropische cerviden worden in toenemende mate bedreigd door antropogene druk, waaronder habitatverlies, landschapsfragmentatie en de daaruit voortvloeiende afname van de genetische diversiteit die gepaard gaat met populatie-isolatie8.
Gedurende de afgelopen 100 jaar zijn assistieve reproductietechnieken met succes geïmplementeerd, in eerste instantie bij laboratoriumzoogdieren, en worden deze geleidelijk overgedragen naar wilde soorten met een hoge prioriteit voor behoud9. Bijgevolg zijn de overgrote meerderheid van de reproductieve biotechnologieën ontwikkeld met behulp van het zoogdiermodel, waardoor deze groep de meeste aandacht in het onderzoek heeft gekregen. Diverse reproductietechnologieën zijn met succes aangepast voor zoogdieren, waaronder kunstmatige inseminatie, embryotransfer, in vitro fertilisatie, sekse-bepaling van gameten en embryo's, en de cryopreservatie van genetische bronnen10. Eén techniek in het bijzonder, de somatische celkernoverdracht (SCNT), is echter opgevallen door de resultaten en de potentiële impact bij toepassing bij bedreigde soorten11.
Van de beschikbare reproductieve biotechnologieën maakt klonen de generatie van individuen mogelijk die genetisch identiek zijn aan het donorhuisdier. Somatische celkernoverdracht (SCNT) is de belangrijkste strategie die voor klonen wordt gebruikt, waarbij een kern van een somatische cel wordt ingebracht in een enucleerde oöcyt. In de context van wilde diersoorten is de toepassing hiervan echter vaak beperkt door de schaarste aan oöcytdonoren en de technische moeilijkheden die gepaard gaan met het winnen van oöcyten12. Deze beperkingen hebben geleid tot de ontwikkeling van interspecies somatische celkernoverdracht (iSCNT) als een complementaire benadering in conservatieprogramma's, waarbij oöcyten van gedomesticeerde dieren worden gebruikt als recipiënte cytoplasten voor kernen afgeleid van bedreigde soorten (Figuur 1). De haalbaarheid van deze benadering is aangetoond door de succesvolle productie van levende nakomelingen van verschillende wilde soorten met behulp van iSCNT13,14,15.
Verschillende strategieën zijn voorgesteld voor de productie van gekloonde embryo's, afhankelijk van de wijze waarop oocyten en donorcellen worden gemanipuleerd. Bij de conventionele aanpak worden oocyten met een intacte zona pellucida geënucleerd, waarna de donorcel in de perivitelline ruimte wordt geïntroduceerd en via elektrofusie wordt gefuseerd16. Een andere mogelijkheid is de directe injectie van de somatische kern in een door de zona omsloten oocyt met behulp van micromanipulatietechnieken zoals micro-injectie17. In tegenstelling hiermee vereenvoudigen systemen zonder zona pellucida (ZP-vrij) de kloonprocedure door verschillende micromanipulatiestappen te vermijden, aangezien enucleatie kan worden uitgevoerd met een stompe pipet zonder dat complexe apparatuur nodig is18. In deze assay stellen wij voor om ZP-vrije oocyten als cytoplasten te gebruiken tijdens iSCNT om gekloonde embryo's te verkrijgen met behulp van een bovine cytoplast en een hertenkaryoplast.
Protocol
Een volwassen vrouwtje van de rode bokhert werd door de milieuautoriteiten teruggevonden in Guaramiranga, Ceará, Brazilië (4°13'53.0'' S, 38°56'42.6'' W). Het dier werd dood ontvangen in het Laboratory for the Conservation of Neotropical Cervids (LACCERNE), State University of Ceará (UECE), Fortaleza, Brazilië. Necropsiebevindingen wezen uit dat de dood het gevolg was van meerdere traumatische letsels veroorzaakt door een projectiel van een vuurwapen dat via de linker dorsolaterale abdominale regio was binnengedrongen. Het gebruik van dit specimen werd geautoriseerd door de Ethics Committee in Animal Experimentation van de State University of Ceará (CEUA-UECE, protocolnummer 450620/2022) en het Brazilian Institute of the Environment and Renewable Natural Resources (IBAMA, protocolnummer 02027.014734/99-34). Daarnaast werd het gebruik van runderovaria goedgekeurd door CEUA/UECE (protocolnummer 31032.004671/2024-81). De details van alle gebruikte reagentia en apparatuur staan vermeld in de Tabel met materialen. Gegevens ter ondersteuning van deze studie zijn beschikbaar via Zenodo onder DOI-nummer 10.5281/zenodo.22129414.
1. Oplossingen en kweekmedia
OPMERKING: Voer alle filtratiebewerkingen uit via een steriel filter van 0,22 µm en bewaar het filtraat tot een week bij 4 °C. Bewaar de stamoplossing bij -20 °C.
- Transportmedium: Voeg 8,1 g NaCl en 0,045 g pentabiotic toe en vul aan tot 900 mL met gedestilleerd water.
- Fosfaatgebufferde zoutoplossing (PBS): Voeg 0,4 g NaCl, 0,01 g KCl, 0,077 g NaH2PO4 en 0,01 g KH2PO4 toe en vul aan tot 50 mL met ultrapuur water.
- Celcultuurmedium: Dulbecco's Modified Eagle Medium (DMEM) aangevuld met 10% (v/v) foetaal runderserum (FBS) en 1,0% (v/v) penicilline, streptomycine en amfotericine B-oplossing (ATB).
- Cryopreservatieoplossing voor fibroblasten: DMEM aangevuld met 10% (v/v) FBS en 10% (v/v) dimethylsulfoxide (DMSO) en 2,0% (v/v) ATB-oplossing.
- Trypsine-EDTA (0,25%).
- Manipulatiemedium: HEPES-gebufferd Tyrode-medium met albumine, lactaat en pyruvaat (H-TALP). Gebruik dit medium voor alle procedures die buiten de incubator worden uitgevoerd. Voeg voor 1 L 6,763 g NaCl, 0,239 g KCl, 0,294 g CaCl2·2H2O, 0,048 g MgCl2, 0,168 g NaHCO3 en 3,575 g HEPES toe aan 981,86 mL steriel embryo-getest water. Draai het mengsel en voeg 10 mL antibioticum-antimycoticum, 1 mL fenolrood, 1,44 mL natriumlactaat, 1 mL van een 100 mM natriumpyruvaat-stockoplossing en 3 g runderserumalbumine (BSA) toe. Stel de osmolaliteit in op 280 mOsm en de pH in op een bereik van 7,2 tot 7,4. Verdeel dit in aliquots van 50 mL en bewaar één maand bij 4 °C.
- In vitro rijpingsmedium: Medium 199 (TCM-199) aangevuld met 10% (v/v) FBS, 10 ng/mL epidermale groeifactor (EGF), 1 mM natriumpyruvaat, 100 µM cysteamine, 10 µg/mL follikelstimulerend hormoon (FSH), 1 µg/mL estradiol en 1% (v/v) ATB. Stel de pH in op 7,2–7,4.
- Hyaluronidase-oplossing (eindconcentratie: 1 mg/mL): Los 10 mg hyaluronidase op in 10 mL H-TALP. Bereid aliquots van 200 µL in 1,5-mL buisjes, klaar voor gebruik.
- Pronase-oplossing (eindconcentratie: 1,5 mg/mL): Los 15 mg pronase op in 10 mL H-TALP. Bereid aliquots van 200 µL in 1,5-mL buisjes, klaar voor gebruik.
- Demecolcine (eindconcentratie: 0,4 µg/mL): Los 5 mg demecolcine (DMC) op in 125 µL DMSO en bereid aliquots van 5 µL (stockoplossing). Vries de aliquots in tot gebruik. Verdun deze door 2 µL van de stockoplossing te mengen met 1998 µL TCM om de werkstockoplossing te verkrijgen. Voeg voor gebruik 5 µL van de werkstockoplossing toe aan 495 µL synthetische eileidervloeistof (SOF).
- Hoechst (eindconcentratie: 10 µg/mL): Los 1 mg/mL Hoechst 33342 op in H-TALP. Bereid aliquots van 5 µL en 1:100 verdunningen in SOF-cultuurmedium.
WAARSCHUWING: Hoechst 33342, gebruikt om nucleair DNA onder UV-licht te visualiseren, is een intercalerende stof en een sterk mutageen. Hanteer dit met passende persoonlijke beschermingsmiddelen. - Fytohemagglutinine (eindconcentratie: 1 mg/mL): Los 5 mg fytohemagglutinine (PHA) op in 500 µL H-TALP. Bereid aliquots van 10 µL in 200 µL buisjes. Voeg voor gebruik 90 µL H-TALP toe.
- Cel-fusiemedia: 0,3 M mannitol, 0,1 mM MgSO4, 0,05 mM CaCl2, 0,5 mM HEPES en 1 mg/mL polyvinylalcohol (PVA) in ultrapuur water. Gebruik op de dag van bereiding.
- Ionomycine (eindconcentratie: 5 µM): Voeg 1 mL DMSO toe aan het ionomycine-vial (1 mg/vial). Voeg 1,67 mL TCM-199 toe. Vries aliquots van 10 µL in 1,5 mL buisjes in bij -20 °C. Voeg voor gebruik 990 µL H-TALP toe aan de inhoud van elk 1,5 mL buisje. Bescherm tegen licht.
- 6-Dimethylaminopurine (eindconcentratie: 2 mM): Los 10 mg 6-dimethylaminopurine (6-DMAP) op. Vries aliquots van 50 µL in 1,5-mL buisjes in bij -20 °C. Voeg voor gebruik 950 µL SOF toe aan de inhoud van elk 1,5 mL buisje.
- Embryocultuurmedium: 0,2 mM L-glutamine, 0,2 mM natriumpyruvaat, 2% essentiële aminozuren Basal Medium Eagle (BME), 1% niet-essentiële aminozuren MEM 100×, 1,0% (v/v) ATB-oplossing, 2,77 mM myo-inositol, 2,5% (v/v) FBS, 10 µL/mL ITS (mengsel van insuline, humane transferrine en natriumseleniet) en 3 g/L BSA.
2. Verzameling en manipulatie van het donorweefselmonster
- Was en scheer het oppervlak van het oor van het vrouwelijke donordier met zeep en water; desinfecteer vervolgens het gebied met alcohol (70%).
- Verwijder een klein oorstukje (1 × 2 cm) met een scalpellamel, plaats dit in een PBS-oplossing met 4% ATB en transporteer het naar het laboratorium terwijl het op 4 °C wordt gehouden.
- Snijd het biopsiemonster met een scalpellamel in kleine stukjes en plaats deze in een Petri-schaal van 35 mm bedekt met kweekmedium. Kweek bij 38,5 °C onder verzadigde vochtigheid met 5% CO₂.
- Vervang het kweekmedium elke 48 u totdat de cellen confluentie bereiken, om contaminatie te voorkomen.
- Verwijder het kweekmedium uit de confluente plaat en voeg 1 mL 0,25% trypsine-EDTA toe aan de Petri-schaal van 35 mm gedurende 2 min.
- Voeg ter inactivering van de trypsine 2 mL celkweekmedium toe. Breng de celsuspensie over naar een buis van 15 mL en centrifugeer deze bij 200 x g gedurende 10 min bij kamertemperatuur (≈ 25 °C).
- Verwijder het supernatant en resuspendeer de celpellet in 10 mL kweekmedium. Passeer de fibroblastenkweek elke 5 dagen.
- Cryopreserveer de fibroblasten door de celpellet te resuspenderen in 1 mL cryopreservatie-oplossing. Breng de celsuspensie over naar cryovials, plaats deze bij -80 °C in een container voor gecontroleerde vries-snelheid gedurende 18 u, en breng ze vervolgens over naar een tank met vloeibare stikstof (-196 °C) tot gebruik. Na cryopreservatie van de fibroblasten kan de celmanipulatie worden gepauzeerd en pas weer worden hervat op het moment van celcyclussynchronisatie.
- Ontdooi en kweek de fibroblasten 1-2 weken voordat ze worden gebruikt voor iSCNT.
3. Synchronisatie van de celcyclus
- Synchroniseer de celcyclus door confluentie in de G0/G1-fase.
- Verwijder het kweekmedium uit de confluente plaat en voeg 1 mL 0,25% trypsine-EDTA toe aan een Petrischaal van 35 mm gedurende 2 min in de CO₂-incubator bij 38,5 °C. Voeg 2 mL kweekmedium toe om de trypsine te inactiveren.
- Overbreng de celsuspensie naar een buis van 15 mL en centrifugeer bij 200 x g gedurende 10 min.
- Verwijder het supernatant en resuspendeer het celsediment in 1-3 mL celkweekmedium voor iSCNT.
4. Oocytverzameling
- Verzamel runderovaria van vaarzen of koeien direct na de slacht en transporteer deze naar het laboratorium in een thermoskan met transportmedium, waarbij een temperatuur van 25-30 °C wordt gehandhaafd.
- Was de ovaria twee keer met kweekmedium en plaats ze in een bekerglas in een waterbad op 38,5 °C.
- Aspireer follikelvloeistof uit follikels met een diameter van 2-8 mm met behulp van een 18-gauge naald bevestigd aan een spuit van 10 mL met H-TALP medium.
- Overbreng de geaspireerde follikelvloeistof naar een conische buis van 50 mL en laat deze minimaal 15 min rusten in een waterbad op 38,5 °C.
5. Oocytrijping en denudering
- Breng na 15 min het gehele pellet voorzichtig over naar een Petrischaal (100 × 15 mm) met behulp van een plastic Pasteurpipet.
- Gebruik een stereomicroscoop om cumulus-oocytcomplexen (COCs) te selecteren die ten minste drie compacte lagen cumuluscellen hebben en overeenkomen met graden I tot III (Tabel 1)19.
- Was de COCs drie keer met half H-TALP en vervolgens tweemaal met in vitro rijpingsmedium.
- Breng 20-25 COCs over naar elke druppel van 100 µL in vitro rijpingsmedium bedekt met minerale olie. Incubeer deze gedurende 20-22 u bij 38,5 °C in een atmosfeer met 5% CO₂ en bij verzadigde vochtigheid.
- Verwijder de cellen uit het COC-cluster door ze gedurende 2 min voorzichtig te pipetteren in 200 µL hyaluronidase-oplossing.
- Was de oocyten vrij van cumuluscellen in 2 mL H-TALP-medium.
- Selecteer onder een stereomicroscoop de oocyten die extrusie van het eerste polaire lichaam vertonen (metafase II - MII) voor de volgende stappen.
6. Verwijdering van de zona pellucida, enucleatie en reconstructie van zona pellucida-vrije oocyten
- Incubeer de oocyten in het MII-stadium in een druppel van 100 µL pronase-oplossing bij 38,5 °C gedurende 1-2 min. Observeer onder een stereomicroscoop totdat de zona pellucida begint uit te dunnen.
- Haal de oocyten onmiddellijk op en plaats ze in kweekmedium aangevuld met 20% FBS om de pronase te inactiveren.
- Incubeer de oocyten zonder zona pellucida in SOF-medium dat 0,4 µg/mL demecolcine bevat gedurende 20 min om een cytoplasmatische uitstulping met DNA te induceren, gevolgd door een tweede incubatie van 20 min in hetzelfde medium aangevuld met 10 µg/mL Hoechst.
- Hanteer de oocyten zonder zona pellucida in druppels H-TALP en voer de enucleatie uit met micromanipulatoren bevestigd aan een omgekeerde microscoop.
- Plaats de oocyt naast de holdingpipet.
- Draai de oocyt tot de uitstulping zich op de positie van drie uur bevindt en aspireer de uitstulping samen met 5-10% van het cytoplasma met een injectiepipet met stomp uiteinde van 25 µm.
- Bevestig de succesvolle enucleatie door het geaspireerde cytoplasma onder ultraviolet licht te bekijken (Figuur 2).
WAARSCHUWING: Blootstelling van oocyten aan DNA-kleurstoffen en ultraviolet licht beschadigt genetisch materiaal en induceert oxidatieve stress. Minimaliseer de blootstellingstijd.
7. Celdfusie
- Stel de fusiekamer samen onder een stereomicroscoop en vul deze met 2 mL fusiemedium bij pH 7.
- Bereid in een Petrischaal van 60 mm vijf druppels van 100 µL en één druppel van 30 µL H-TALP voor, en voeg 50 µL PHA toe.
- Voeg 5 µL fibroblasten toe aan de druppel van 30 µL H-TALP, selecteer de uniforme, refractieve cellen en breng deze over naar een druppel van 100 µL H-TALP.
- Breng de genucleerde oocyten over naar een druppel van 100 µL H-TALP.
- Exposeer de oocyt gedurende 4 s aan de PHA-druppel, plaats deze op een cel en bevestig dat beide aan elkaar zijn gehecht. Breng het complex vervolgens over naar een TALP-H-druppel die vrij is van inhoud.
- Nadat de oocyt en de cel zijn gehecht, worden ze overgebracht naar een plaat met 2 mL fusiemedium om ze te laten bezinken. Plaats het complex vervolgens in de fusiekamer tussen de elektroden, waarbij de cel op de zes- of twaalfuurspositie wordt geplaatst.
WAARSCHUWING: De activatiebuffers die tijdens de elektrofusie worden gebruikt, bevatten ionomycine, wat de cellulaire calciumhomeostase verstoort. Elektrische velden met een hoog voltage vormen een risico op elektrische schokken of vlambogen als de apparatuur nat is of onjuist wordt gehanteerd. - Voer de fusie uit met behulp van een microfusiekamer met een elektrodeafstand van 0,2 mm. Pas met een electroporator een enkele pulstrein toe, bestaande uit twee unidirectionele gelijkstroompulsen bij 0,72 kV/cm, waarbij elke puls 30 µs duurt met een interval van 0,1 s tussen de pulsen.
- Breng na het toepassen van de puls elk oocyt-celpaar individueel over naar microdruppels van 5 µL SOF aangevuld met 2,5% FBS en kweek deze bij 38,5 °C in een 5% CO₂-atmosfeer.
- Beoordeel de fusie na 30 min individueel onder een stereomicroscoop.
- Onderwerp alle niet-gefuseerde structuren aan een tweede fusieronde.
- Beschouw de gefuseerde complexen als gereconstitueerde embryo's zonder zona pellucida en incubeer deze gedurende 2 u tot de activatie (herprogrammeringstijd).
8. Oocytenactivatie en embryo-cultuur
- Incubeer de gereconstrueerde structuren gedurende 4 min in druppels van 100 µL H-TALP medium met 5 µM ionomycine.
- Was de gereconstrueerde structuren in vier druppels van 100 µL H-TALP medium.
- Incubeer de gereconstrueerde structuren gedurende 3 u in druppels van 100 µL SOF medium met 2 mM 6-DMAP.
- Was de gereconstrueerde structuren in vier druppels van 100 µL SOF medium.
- Maak microwell-plates door een verhitte glazen capillaire lichtjes tegen de bodem van een Petri-schaal van 35 × 10 mm te drukken. Maak tussen de 20 en 25 microwells, elk met een diameter van 500 µm en een diepte van 250 µm20.
- Plaats de gereconstitueerde embryo's individueel in de aangepaste microplate-wells, bedek ze met 100 µL SOF medium en bedek het geheel tot slot met 3 mL minerale olie. Plaats de microplates gedurende 7 dagen in een tri-gas incubator met 5% CO₂, 5% O₂ en 90% N₂.
Resultaten
De resultaten werden geanalyseerd met behulp van R-software (v.4.5.2). De percentages klieving en blastocystvorming werden tussen paren (hert/rund vs rund/rund) vergeleken met behulp van de exacte toets van Fisher. Er werden tien replicates uitgevoerd: vier van het hert/rund-paar en zes van het rund/rund-paar. Daarnaast werd voor alle analyses het significantieniveau vastgesteld op 5%.
Tijdens de assay werden 472 runder-oocyten, verkregen van een lokaal slachthuis, gebruikt als cytoplast-recipiënten. Echter, na in vitro rijping en daaropvolgende elektrofusie faalden 73 structuren in het fuseren en werden deze uitgesloten van verdere stappen, wat resulteerde in 399 succesvol gefuseerde karyoplast/cytoplast-structuren. Van dit totaal werden de volgende paren (karyoplast/cytoplast) gebruikt: vier replica's van hert/rund (n = 175) en zes replica's van rund/rund (n = 224) (Tabel 2).
Om de impact van iSCNT te beoordelen, werden gereconstrueerde embryo's zonder zona pellucida gekweekt in microwells tot dag 7. Representatieve microfoto's van een morula en blastocyst zonder zona pellucida worden getoond in Figuur 3.
Tabel 2 geeft de splitsings- en blastocystpercentages weer die in dit experiment zijn verkregen. Het splitsingspercentage vertoonde geen significante verschillen (P = 0,74) tussen de groepen (hert/rund- en rund/rund-paren). Wat betreft het percentage blastocystvorming werd daarentegen een statistisch verschil (P = 0,02) waargenomen, met een hoger percentage in de intraspecifieke kloningsgroep. Het is echter belangrijk om de beperking van de statistische power voor dit type experiment te benadrukken, waarbij het aantal interspecifieke klonen doorgaans klein is.
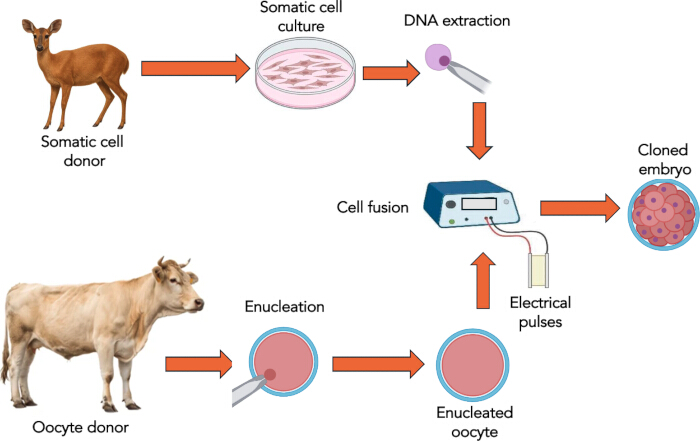
Figuur 1: Schematische fasen van interspecifieke Somatische Cel Kernoverdracht. Koeien worden gebruikt als cytoplastdonoren, terwijl herten worden gebruikt als karyoplastdonoren. Na het verkrijgen van het gekloonde embryo kan dit worden overgeplaatst naar recipiënte vrouwtjes of cryogebewaard voor toekomstige transfer. Klik hier om een grotere versie van deze figuur te bekijken.
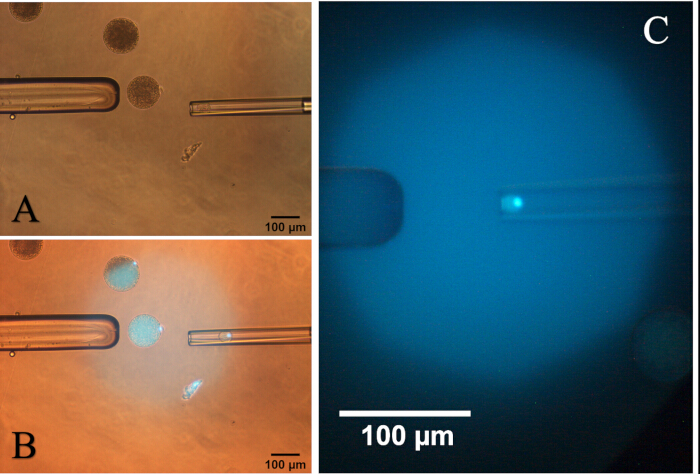
Figuur 2: Fotomicrografie van een geactiveerde oöcyt met een cytoplasmatische uitstulping. (A) Rotatie van de oöcyt om de uitstulping op de drie-uurspositie te plaatsen. (B) Aspiratie van de uitstulping met 5-10% van het cytoplasma onder blootstelling aan ultraviolet licht. (C) Cytoplasma en de uitstulping in de aspiratiepipet onder ultraviolet licht. Klik hier om een grotere versie van deze figuur te bekijken.
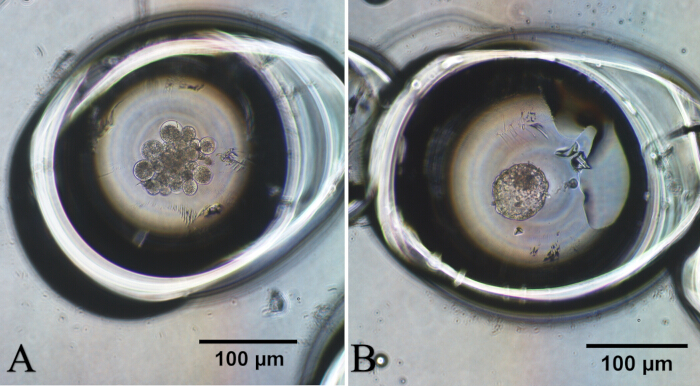
Figuur 3: Fotomicrografie van hertenembryo's geproduceerd door interspecifieke somatische celkernoverdracht. (A) Gekloond embryo in het morulastadium. (B) Gekloond embryo in het blastocyststadium. Klik hier om een grotere versie van deze figuur te bekijken.
| Graad | Aantal cumuluslagen | Expansie van het cumuluscomplex |
| I | > 3 | Volledige cumulusbewolking met verschillende compacte en licht losse cellagen |
| II | 2 - 3 | Lichte uitzetting in de buitenste cellagen |
| III | 1 | Gedeeltelijke cumulusbedekking en losse cellagen |
| IV | 0 | Geen cumulus |
Tabel 1: Classificatie van runder-oocyten die vervolgens zullen worden gedenucleerd en gebruikt als cytoplasten tijdens interspecifieke somatische celkernoverdracht (Aangepast van Aguila et al.)19.
| Groepen (carioplast/cytoplast) | Aantal replicaten | Aantal gereconstrueerde embryo's | Aantal gesplitste (%) | Aantal blastocysten (%) |
| Hert/vee | 4 | 175 | 122 (69,7)a | 8 (4,6)a |
| Vee/vee | 6 | 224 | 160 (71,4)a | 24 (10,7)b |
| Verschillende letters in dezelfde kolom duiden op een statistisch verschil. | ||||
| Klovingspercentage: P = 0,74 | ||||
| Blastocystpercentage: P = 0,02 | ||||
Tabel 2: In vitro ontwikkeling van gekloonde embryo's van het rode dwerghert met gebruik van bovine cytoplasten. Er werden tien herhalingen uitgevoerd: vier van het paar hert/rund en zes van het paar rund/rund. De klovings- en blastocystpercentages werden berekend met het aantal gereconstrueerde embryo's als noemer.
Discussie
Het is reeds goed gedocumenteerd dat het genoom van bedreigde soorten kan worden gereprogrammeerd met behulp van oocyten van landbouwdieren, in het bijzonder runderen en varkens, die de grootste bron van cytoplasten vormen21. Een van de grootste vorderingen die zijn bereikt in iSCNT was het klonen van de Pyreneïsche stenbok (Capra pyrenaica pyrenaica), een ondersoort die was uitgestorven na de dood van het laatste bekende individu. De gereconstrueerde embryo's werden verkregen door epitheelcellen van de stenbok te fuseren met oocyten van de geit (Capra hircus). De auteurs realiseerden de geboorte van een vrouwtje zonder externe morfologische afwijkingen. De nakomelingen vertoonden echter ernstig respiratoir falen en stierven enkele minuten na de geboorte22.
Een van de sterkste kandidaten voor "wederopstanding" is de wolharige mammoet (Mammuthus primigenius). Om kloneren mogelijk te maken, is de beschikbaarheid van levensvatbaar weefsel met identificeerbare kernen essentieel, wat problematisch is voor een soort die ongeveer 10.000 jaar geleden is uitgestorven. Desondanks voldoen mammoetlichamen die in de bevroren aardlaag zijn gevonden aan de minimale vereisten voor iSCNT23. Mogelijk zijn bedreigde diersoorten echter geschiktere kandidaten om te profiteren van het gebruik van deze techniek.
De segmentatiesnelheid die in ons onderzoek werd waargenomen, toonde aan dat de activatie en de eerste embryonale deling niet werden beïnvloed door de interspecifieke combinatie van kern en cytoplasma. Tijdens de reconstructiefase vertoonden de manipulatie en fusie van de structuren (karyoplast/cytoplast) in beide groepen dezelfde technische eenvoud, wat wijst op structurele compatibiliteit tussen de soorten. Wat betreft het blastocystpercentage suggereren de resultaten dat, hoewel de reconstructie en vroege activatie van het iSCNT-embryo geen beperkende factor zijn, er een nucleo-cytoplasmatische incompatibiliteit is die zich manifesteert in latere ontwikkelingsstadia, waarschijnlijk gerelateerd aan onvolledige epigenetische herprogrammering of de maternaal-zygotische transitie die het vermogen van het hybride embryo om het blastocyststadium te bereiken beïnvloedt24. De efficiëntie van iSCNT neigt groter te zijn wanneer karyoplasten en cytoplasten afkomstig zijn van fylogenetisch verwante soorten, aangezien de natuurlijke productie van levensvatbare hybride nakomelingen duidt op een zekere mate van nucleocytoplasmatische compatibiliteit tussen de twee soorten23. Zo is reeds aangetoond dat SCNT tussen ondersoorten gezonde nakomelingen kan produceren. De auteurs gebruikten cytoplasten van een teef en fibroblasten van een wolf en transfereerden de embryo's naar 12 vrouwtjes, wat resulteerde in de geboorte van een nakomeling25.
Het gebruik van iSCNT kampt met een grote "vermogensbeperking" wat betreft de biologische en ontwikkelingsdoelmatigheid, die drastisch afneemt naarmate de evolutionaire afstand tussen de donorkern en de ontvangende oöcyt toeneemt. Hoewel het succesvol is tussen nauw verwante soorten (bijv. tam rundvee en gaur)26, mislukt het routinematig om levensvatbare nakomelingen of stabiele embryonale cellijnen te produceren bij pogingen om verder gelegen taxonomische grenzen te overschrijden.
Kloneren vormt een belangrijk instrument voor fok- en conservatieprogramma's voor dieren, omdat het de vermeerdering van genetisch superieure individuen mogelijk maakt, de generatie van transgene dieren ondersteunt en bijdraagt aan het behoud op lange termijn van waardevolle genetische bronnen via genenbanken. Niettemin wordt de adoptie van kloneren in fokprogramma's voor vee nog steeds beperkt door het lage aantal geproduceerde levende dieren ten opzichte van het aantal overgedragen embryo's18. Huidige benaderingen voor de productie van gekloonde embryo's zijn over het algemeen onderverdeeld in twee categorieën: conventioneel kloneren en ZP-vrij kloneren. Bij de conventionele benadering is een micromanipulator vereist om de kern van de oocyten te verwijderen en de donor somatische cel in de recipiënte cytoplast te introduceren26. In tegenstelling tot conventioneel kloneren wordt de ZP-vrije methode uitgevoerd zonder micromanipulatie27. De resultaten die in ons onderzoek zijn behaald, waren zeer vergelijkbaar met die geverifieerd met behulp van iSCNT, zowel voor de delingssnelheid als voor de productie van blastocysten20,21.
Ten slotte, rekening houdend met de verschillende stappen van deze procedure, is het belangrijk om de kritieke punten en praktische probleemoplossing te benadrukken. Wat betreft de verwijdering van de ZP, biedt ZP-vrije klonering verschillende voordelen, waaronder gebruiksgemak, kosteneffectiviteit en een relatief verbeterde live birth rate per getransfereerde embryo28. Het bevestigen van een volledige nucleaire verwijdering (enucleatie) zonder fatale schade aan de cytoplast te veroorzaken, bepaalt of de gereconstrueerde structuur een gekloond embryo succesvol kan ondersteunen. Hoewel bekend is dat UV-blootstelling schadelijke effecten heeft29, wordt het routinematig gebruikt in de meeste kloneringslaboratoria. Tot slot mist de ZP-vrije embryocultuur de beschermende buitenste glycoproteïne-schil, wat leidt tot grote problemen zoals een hoge fysieke fragiliteit tijdens de hantering en blastomeer-dissociatie30.
Concluderend moeten de resultaten van onze studie worden geïnterpreteerd als preliminaire bewijzen van de technische haalbaarheid van het iSCNT-protocol in de combinatie hert/rund, en niet als definitief bewijs van de productieve efficiëntie ervan. Daarom zijn aanvullende studies met een groter aantal herhalingen nodig om deze bevindingen te bevestigen.
Openbaarmakingen
De auteurs hebben geen belangenconflicten om te vermelden.
Dankbetuigingen
Dit werk werd ondersteund door de Cearense Foundation for Scientific and Technological Development Support (FUNCAP, Fortaleza, Brazilië, subsidienummer 11212233/2022) en de National Institutes of Science and Technology (INCT/CNPq, subsidienummer 406866/2022-8).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Aspiratienaald (18G) | LABIMPORT | 353601 | Wegwerplaag naald, kort afgeknipt |
| 6-Dimethylaminopurine (6-DMAP) | Sigma-Aldrich | D2629 | |
| Antibioticum–antimycotisch | Gibco, Thermo Fisher Scientific | 15240062 | |
| Runder serumalbumine | Sigma-Aldrich | A9647 | |
| Calciumchloride-dihydraat (CaCl2·2H2O)·2H2O) | Sigma-Aldrich | C7902 | |
| Celkweekfles T-25 | Corning | 430639 | |
| CellTram-micro-injector | Eppendorf | 5196 000.021 | |
| Centrifuge | Eppendorf | 5702 | Gebruikt voor centrifugatie van cellen bij 200 × centrifugeer 10 minuten om de monsters te pelletteren en te wassen voorafgaand aan de kernoverdrachtsprocedures. |
| Centrifugebuizen (50 mL) | Corning | Kopieer de gewenste hoeveelheid van de voorbereide 2× PCR-mastermix in een steriele microcentrifugebuis. Voeg vervolgens de specifieke primers en het DNA-sjabloon toe aan de mix. Meng de inhoud voorzichtig door kort te pipetteren of door de buis zachtjes te tikken. Centrifugeer de buis kort om eventuele luchtbellen te verwijderen en om alle reagentia op de bodem te concentreren. Plaats de buis vervolgens in de thermocycler om met de amplificatie te beginnen. | |
| Cryovials (1,8 ml) | Nunc / Thermo Fisher | 368632 | |
| Cysteamine | Sigma-Aldrich | M9768 | |
| Demecolcine | Sigma-Aldrich | D1925 | |
| Gedestilleerd water. | _ | _ | |
| DMSO (invriezen van cellen) | Sigma-Aldrich | D2650 | 10% cryoprotectant voor cryopreservatie van donorcellen |
| Dulbecco's Modified Eagle Medium (DMEM) | Gibco / Thermo Fisher | 11995065 | |
| Enucleatiepipet (20–25 µm ID) | Narishige | GD-1 | |
| Epidermale groeifactor (EGF) | Sigma-Aldrich | E4127 | |
| Essentiële aminozuren BME | Sigma-Aldrich | M5550 | |
| Estradiol | Sigma-Aldrich | E8875 | |
| EVE Incubator (5% O2)2, 5% CO22, 90% N2) | WTA medisch | REF. 23578 | |
| Foetaal Runderserum (FBS) | Bio Nutrientes, Induslab | FEN-500 | |
| FSH (Folltropin-V) | Vetoquinol | Q-7090-124 | |
| Glazen capillair met filament | Narishige | GD-1 | Deze glazen capillair wordt gebruikt om microwells in de petrischaal te maken |
| Verwarmde plaat | WTA medisch | 17656 | |
| Hepes | Sigma-Aldrich | H6147 | |
| Hoechst 33342 (DNA-kleurstof) | Sigma-Aldrich | B2261 | |
| Vastzetpipet (120 μm OD) | Narishige | GD-1 | |
| Hyaluronidase | Sigma-Aldrich | H4272 | |
| Omgekeerde microscoop ECLIPSE | Nikon | TE2000-U | |
| Ionomycine (calciumionofoor A23187) | Sigma-Aldrich | I0634 | |
| ITS | Sigma-Aldrich | I2771 | |
| KCl | Sigma-Aldrich | P5405 | |
| KH2PO4 | Sigma-Aldrich | P5655 | |
| Laminar Flow Cabinet Isocide | Esco | 2120765 | Laminaire flowkast die een steriele werkomgeving biedt voor embryo- en celkulturprocedures. |
| L-glutamine | Sigma-Aldrich | G8540 | |
| Opslagdewar voor vloeibare stikstof | Nitroagro | Varieert | |
| Magnesiumsulfaat (MgSO4) | Sigma-Aldrich | M2643 | |
| Mannitolfusiemedium (0,3 M) | Sigma-Aldrich | M9546 | |
| MgCl2 | Sigma-Aldrich | M8266 | |
| Microforge MF-900 | Narishige | MF-900 | |
| Micromanipulatorsysteem | Narishige | MM-89 / TransferMan 4r | |
| Micropipet-trekker | Narishige | Narishige PC-100 | |
| Micropipetten (10 µL, 20 µL, 100 µL, 200 µL, 1000 µL) | Eppendorf | Research Plus-serie | |
| Microfusiekamer | Eppendorf | 12816532 | Is een gespecialiseerd accessoire met een gap van 0,2 mm, ontworpen voor electroporatie-applicaties |
| Minerale olie (embryo-getest) | Sigma-Aldrich | M8410 | |
| Multiporator | Eppendorf | 4308 000.015 | |
| Myo-inositol | Sigma-Aldrich | I7508 | |
| NaCl | Sigma-Aldrich | S5886 | |
| NaH2PO4 | Sigma-Aldrich | S5011 | |
| NaHCO3 | Sigma-Aldrich | S4219 | |
| Niet-essentiële aminozuren MEM | Sigma-Aldrich | M7145 | |
| Pentabiotic | Zoetis | 10005048 | vial van 2.400.000 IE. |
| Petrischaal 35 mm (embryo-getest) | Corning | 430165 | |
| Petrischaal 60 mm (embryo-getest) | Corning | 430196 | |
| Fenolrood | Sigma-Aldrich | P0290 | |
| Pipetpunten 1000 µL | Eppendorf | 9401030 | |
| Pipetpuntjes 200 µL | Eppendorf | 94052300 | |
| Pipetpuntjes zonder filter (0,5–10 µL) | Axygen | T-300 | |
| Poly(vinylalcohol) (PVA) | Sigma-Aldrich | P8136 | |
| Pronase (protease uit S. griseus) | Sigma-Aldrich | P8811 | |
| Natriumlactaat | Sigma-Aldrich | L7900 | |
| Natriumpyruvaat | Sigma-Aldrich | P4562 | |
| Stereomicroscoop | Nikon | SMZ800 | |
| Steriel embryo-getest water | Sigma-Aldrich | W3500 | |
| Steriel filter (0.22 μm) | Corning | 431154 | |
| TCM-199 | Sigma-Aldrich | M2154 | |
| Tri-gas incubator (5% O2)2, 5% CO₂2, 90% N2) | WTA medisch | REF. 23578 | |
| Trypsine-EDTA (0,25%) | Gibco / Thermo Fisher | 25200056 | |
| Ultrapuur wáter | Sigma-Aldrich | W3500 | |
| UV-lamp / fluorescentiemodule | Leica / Olympus | Varieert | Korte UV-blootstelling om enucleatie te verifiëren; minimaliseer fototoxiciteit |
Referenties
- Flagstad O, Roed KH. Refugial origins of reindeer (Rangifer tarandus.) inferred from mitochondrial DNA sequences. Evolution. 2003;57(3):658-70.
- Schilling AM, Rössner GE. The (sleeping) beauty in the beast—a review on the water deer, Hydropotes inermis. Hystrix It J Mamm. 2017;28(2):121-33.
- Newman BA, D’Angelo GJ. A review of cervidae visual ecology. Animals (Basel). 2024;14(3):420.
- Rola LD. Integrating cryobiology and conservation: the role of biobanks for neotropical deer in Latin America. Biopreserv Biobank. 2025;23(6):575-88.
- Duarte JMB, González S, Maldonado JE. The surprising evolutionary history of South American deer. Mol Phylogenet Evol. 2008;49:17-22.
- Bernegossi AM, et al. Resurrection of the genus Subulo. for the gray brocket deer, with designation of a neotype. J Mammal. 2023;104(3):619-33.
- Morales-Donoso JA, et al. Revalidation of Passalites Gloger, 1841 for the Amazon brown brocket deer P. nemorivagus. (Cuvier, 1817) (Mammalia, Artiodactyla, Cervidae). ZooKeys. 2023;1167:241-64.
- El Bizri HR. Exposing illegal hunting and wildlife depletion in the world's largest tropical country through social media data. Conserv Biol. 2024;38:e14334.
- Pasquariello R, et al. Use of assisted reproductive technologies (ARTs) to shorten the generational interval in ruminants: current status and perspectives. Theriogenology. 2024;225(1):16-32.
- Herrick JR. Assisted reproductive technologies for endangered species conservation: developing sophisticated protocols with limited access to animals with unique reproductive mechanisms. Biol Reprod. 2019;100:1158-70.
- Iqbal A, et al. Conservation of endangered species through somatic cell nuclear transfer (SCNT). Conserv Genet Resour. 2021;13:349-57.
- Hwang I. Successful cloning of coyotes through interspecies somatic cell nuclear transfer (iSCNT) using domestic dog oocytes. Biol Reprod. 2012;87(1):56.
- Loi P, et al. Genetic rescue of an endangered mammal by cross-species nuclear transfer using post-mortem somatic cells. Nat Biotechnol. 2001;19:962-4.
- Gómez MC, et al. Birth of African wildcat cloned kittens born from domestic cats. Cloning Stem Cells. 2004;6:247-58.
- Wani NA, Vettical BS, Hong SB. First cloned Bactrian camel (Camelus bactrianus.) calf produced by interspecies somatic cell nuclear transfer: a step towards preserving the critically endangered wild Bactrian camels. PLoS One. 2017;12:e0177800.
- Ross PJ, Cibelli JB. Bovine somatic cell nuclear transfer. Methods Mol Biol. 2010;636:155-77.
- Choi YH, Velez IC, Macias-Garcia B, Hinrichs K. Timing factors affecting blastocyst development in equine somatic cell nuclear transfer. Cell Reprogram. 2015;17:124-30.
- Herrid H, Van Eenennaam H. Application of zona-free cloning technologies to livestock breeding programmes. Anim Reprod Sci. 2026;287:108107.
- Aguila L, et al. Oocyte selection for in vitro embryo production in bovine species: noninvasive approaches for new challenges of oocyte competence. Animals. 2020;10:2196.
- Vajta G, et al. New method for culture of zona-included or zona-free embryos: the well of the well (WOW) system. Mol Reprod Dev. 2000;55(3):256-64.
- Lagutina I, Fulka H, Lazzari G, Galli C. Interspecies somatic cell nuclear transfer: advancements and problems. Cell Reprogram. 2013;15:374-84.
- Folch J, et al. First birth of an animal from an extinct subspecies (Capra pyrenaica pyrenaica.) by cloning. Theriogenology. 2009;71:1026-34.
- Loi P, Saragusty J, Ptak G. Cloning the mammoth: a complicated task or just a dream. Adv Exp Med Biol. 2014;753:489-502.
- Mastromonaco GF, et al. The influence of nuclear content on developmental competence of gaur cattle hybrid in vitro fertilized and somatic cell nuclear transfer embryos. Biol Reprod. 2007;76:514-23.
- Kim MK, et al. Endangered wolves cloned from adult somatic cells. Cloning Stem Cells. 2007;9:130-7.
- Lanza RP, et al. Cloning of an endangered species (Bos gaurus.) using interspecies nuclear transfer. Cloning. 2000;2(2):79-90.
- Hill J, et al. The effect of donor cell serum starvation and oocyte activation compounds on the development of somatic cell cloned embryos. Cloning. 1999;1:201-8.
- Verma G, et al. Handmade cloning: recent advances, potential and pitfalls. J Anim Sci Biotechnol. 2015;6:43.
- Takenaka M, Horiuchi T, Yanagimachi R. Effect of light on development of mammalian zygote. Proc Natl Acad Sci U S A. 2007;104:14289-93.
- Madani S, Machaty Z, Vajta G. An alternative way to improve mammalian embryo development in vitro: culture of zona pellucida-free embryos. Cell Reprogram. 2022;24(3):111-7.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar