Deze studie integreert netwerkfarmacologie, gevalideerde moleculaire docking en in vitro experimenten om kandidaat verbinding-doelwitrelaties tussen bestanddelen van Cordyceps sinensis en processen gerelateerd aan chronische glomerulonefritis te evalueren. β-Sitosterol werd geselecteerd voor validatie op verbindingsniveau en bleek de inflammatoire en profibrotische activatie in mesangiaalcelmodellen te verminderen.
Methodenartikel
Netwerkgestuurde evaluatie van β-sitosterol in inflammatoire en profibrotische mesangiale-celmodellen relevant voor chronische glomerulonefritis
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Chronische glomerulonefritis (CGN) wordt gekenmerkt door aanhoudende inflammatoire schade en progressieve fibrotische remodellering, maar de relaties tussen verbindingen en targets die ten grondslag liggen aan interventies op basis van natuurproducten blijven onvolledig gedefinieerd. Deze studie integreerde netwerkfarmacologie, gevalideerde moleculaire docking en in vitro experimenten om kandidaatbestanddelen van Cordyceps sinensis (C. sinensis) te evalueren in CGN-gerelateerde pathologische processen. Kandidaatbestanddelen van C. sinensis werden gescreend, en de verbinding-geassocieerde targets afgeleid van het Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform werden gekruist met CGN-geassocieerde genen. Functionele verrijking en proteïne-proteïne-interactieanalyses werden gebruikt om biologische processen en hub-targets te prioriteren. PTGS2 werd geïdentificeerd als een belangrijk overlappend target. Moleculaire docking werd uitgevoerd met behulp van een celecoxib-gebonden COX-2 structuur. Re-docking van de co-gekristalliseerde celecoxib-ligand reproduceerde de kristallografische pose met een RMSD van 0,876 Å, wat het docking-protocol ondersteunt. β-Sitosterol en linoleylacetaat vertoonden een voorspelde compatibiliteit met de COX-2 docking-regio, met bindingsaffiniteiten van respectievelijk −7,2 en −7,5 kcal/mol. β-Sitosterol werd geselecteerd voor validatie op verbindingniveau in HBZY-1 rat glomerulaire mesangiale cellen. Bij 0,5–10 µM reduceerde β-sitosterol de celviabiliteit niet merkbaar. In Lipopolysaccharide (LPS)-gestimuleerde cellen reduceerde β-sitosterol de expressie van Tnf, Il6 en Ptgs2, verminderde de productie van prostaglandine E2 (PGE2) en verlaagde de hoeveelheid cyclooxygenase-2 (COX-2) proteïne. In cellen behandeld met transforming growth factor β1 (TGF-β1) reduceerde β-sitosterol de expressie van Col1a1 en Acta2 en verminderde de hoeveelheid alpha-smooth muscle actin (α-SMA) proteïne. Deze bevindingen leveren hypothese-genererend bewijs dat β-sitosterol inflammatoire en profibrotische activatie moduleert in mesangiale-celmodellen, maar zij stellen geen directe COX-2 enzymatische inhibitie of therapeutische effectiviteit bij CGN vast.
Inleiding
Chronische glomerulonefritis (CGN) omvat een heterogene groep glomerulaire aandoeningen die kunnen voortschrijden naar chronische nierziekte en terminale nierinsufficiëntie1. Het kenmerkt zich door aanhoudende glomerulaire schade, inflammatoire activatie en progressieve fibrotische remodellering2,3. Hoewel corticosteroïden en immunosuppressiva bij geselecteerde patiënten worden gebruikt, blijft ziektecontrole op lange termijn in veel gevallen moeilijk en zijn behandelgerelateerde bijwerkingen gebruikelijk1,4,5. De progressie van CGN omvat interagerende pathologische processen, waaronder immuunactivatie, endotheeldisfunctie, oxidatieve stress en accumulatie van de extracellulaire matrix3,6,7. Daarom kan het identificeren van moleculaire knooppunten die inflammatoire en profibrotische responsen verbinden, helpen bij het genereren van toetsbare hypothesen voor ziekterelevante interventiestrategieën.
Cordyceps sinensis (C. sinensis) is gebruikt in klinische en experimentele contexten gerelateerd aan de nieren en er is gemeld dat het ontstekingsremmende, anti-apoptotische en cytoprotectieve effecten uitoefent in verschillende ziektemodellen8,9,10. De moleculaire basis waardoor de kandidaatbestanddelen kunnen interageren met doelwitten die relevant zijn voor glomerulonefritis is echter onvoldoende gedefinieerd11. Gegeven de multicomponentaard van C. sinensis en de mechanistische heterogeniteit van CGN, biedt netwerkfarmacologie een nuttig kader voor het prioriteren van relaties tussen kandidaatverbindingen, doelwitten en pathways12,13.
In deze studie werden compound-screening, target-identificatie, ziekte-gen-intersectieanalyse, functionele verrijking, eiwit-eiwitinteractienetwerkanalyse, moleculaire docking en in vitro validatie geïntegreerd om potentiële moleculaire relaties tussen kandidaatbestanddelen van C. sinensis en pathologische processen gerelateerd aan CGN te onderzoeken. Prostaglandine-endoperoxide synthase 2 (PTGS2) werd als hub-target uit het compound-ziekte-netwerk geprioriteerd en geëvalueerd via moleculaire docking met behulp van een celecoxib-gebonden cyclooxygenase-2 (COX-2) structuur met redocking-validatie. Op basis van de netwerkresultaten, de docking-analyse en voorafgaand bewijs voor anti-inflammatoire en anti-fibrotische activiteit werd β-sitosterol geselecteerd als representatieve kandidaat-compound voor downstream-validatie14,15,16. Lipopolysaccharide (LPS)-gestimuleerde mesangiale cellen werden gebruikt om inflammatoire activatie en de COX-2/prostaglandine E2 (PGE2)-geassocieerde respons te beoordelen, terwijl een transforming growth factor β1 (TGF-β1)-geïnduceerd model werd ingezet om de expressie van profibrotische markers te evalueren.
Protocol
De netwerkfarmacologische en bio-informatische analyses waren gebaseerd op openbaar toegankelijke databases en betroffen geen menselijke deelnemers of dieren. De in vitro experimenten werden uitgevoerd met een gevestigde cellijn en vereisten geen ethische goedkeuring volgens de institutionele vereisten.
Screening van potentiële bestanddelen en terugwinning van doelwit
Kandidaatbestanddelen en hun bijbehorende targets werden op 13 juli 2025 opgehaald uit de Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform (TCMSP) met behulp van de zoekterm “dongchongxiacao”. Verbindingen met een voorspelde orale biologische beschikbaarheid van ten minste 30% en een drug-likeness van ten minste 0,18 werden behouden. Zeven kandidaatbestanddelen voldeden aan beide screeningscriteria. Het molecuulgewicht, de orale biologische beschikbaarheid, de drug-likeness en andere beschikbare farmacokinetische descriptoren werden uit de TCMSP geregistreerd voor een beschrijvende vergelijking.
De informatie over verbinding-doelwitrelaties die geassocieerd was met de behouden bestanddelen werd rechtstreeks gedownload van TCMSP. Dubbele doelwitvermeldingen werden handmatig verwijderd bij het samenstellen van de niet-redundante doelwitset, terwijl de oorspronkelijke verbinding-doelwitrelaties werden behouden voor de daaropvolgende netwerkconstructie. Omdat TCMSP doelwitnamen in hun volledige vorm verstrekte in plaats van gestandaardiseerde gensymbolen, werd elk doelwit opgezocht in de UniProt-database (geraadpleegd op 14 juli 2025). De overeenkomstige menselijke vermelding werd geselecteerd en de doelwitnaam werd omgezet in het officiële gensymbool. De gestandaardiseerde dataset van verbindingen en doelwitten werd gebruikt voor de intersectie tussen ziekte en doelwit en voor de analyse van het verbinding-doelwitnetwerk.
Verzameling van glomerulonefritis-geassocieerde genen en doelwitintersectie
Ziekte-geassocieerde genen werden op 14 juli 2025 opgehaald uit GeneCards, DisGeNET, PharmGKB en de Therapeutic Target Database met behulp van de zoekterm “glomerulonephritis”. Voor GeneCards werden vermeldingen met relevantiescores hoger dan de mediane score van 10 behouden. Geschikte vermeldingen uit de andere databases werden opgenomen op basis van hun gecureerde ziekte-target-annotaties. Gennamen werden gestandaardiseerd naar officiële menselijke gensymbolen en dubbele vermeldingen werden verwijderd. Deze procedure leverde 1.134 unieke glomerulonefritis-geassocieerde genen op. Omdat de zoekopdracht de bredere term “glomerulonephritis” gebruikte, werd de resulterende dataset beschouwd als relevant voor moleculaire processen geassocieerd met chronische glomerulonefritis, in plaats van specifiek voor één histopathologisch subtype.
Op basis van TCMSP afgeleide targets geassocieerd met verbindingen werden met behulp van R gekruist met de set genen die geassocieerd zijn met de ziekte. Hierbij werden drieëntwintig overlappende targets geïdentificeerd. Venn-diagrammen werden gegenereerd met het R-pakket venn, en het netwerk van overlappende targets van verbindingen werd geconstrueerd en gevisualiseerd met Cytoscape. De relaties tussen de kandidaat-bestanddelen en de overlappende targets zijn samengevat in Tabel 1.
Functionele verrijking en analyses van eiwit-eiwitinteracties
Gene Ontology (GO) en Kyoto Encyclopedia of Genes and Genomes (KEGG) verrijkingsanalyses werden uitgevoerd in R met behulp van clusterProfiler en org.Hs.eg.db. Gene Ontology-termen werden geanalyseerd in de categorieën biologisch proces, cellulaire component en moleculaire functie. P-waarden werden gecorrigeerd voor meervoudig testen met de Benjamini-Hochberg-methode, en termen of pathways met gecorrigeerde P-waarden lager dan 0,05 werden behouden. Verrijkte termen en pathways werden weergegeven met behulp van onafhankelijk gegenereerde staafdiagrammen en dot plots.
De 23 overlappende targets werden ingevoerd in STRING, waarbij Homo sapiens als organisme werd geselecteerd en een minimale interactiescore van meer dan 0,4 werd gehanteerd. Het resulterende proteïne-proteïne-interactienetwerk werd geïmporteerd in Cytoscape. De netwerktopologie werd geëvalueerd met behulp van CytoNCA op basis van graad, betweenness, closeness, eigenvector-centraliteit, lokale gemiddelde connectiviteit en netwerkcentraliteit. Hub-targets werden gedefinieerd als knooppunten waarbij de waarden voor graad, betweenness-centraliteit, closeness-centraliteit, eigenvector-centraliteit, lokale gemiddelde connectiviteit en netwerkcentraliteit allen hoger waren dan de overeenkomstige mediaanwaarden van het netwerk. Deze analyse prioriteerde negen hub-targets voor verdere interpretatie.
Moleculaire docking en validatie door redocking
Moleculaire docking werd uitgevoerd met behulp van de celecoxib-gebonden cyclooxygenase-2 structuur PDB ID 3LN1. Keten A en de bijbehorende heemgroep werden behouden als receptor, terwijl kristallografische watermoleculen en het co-gekristalliseerde celecoxib-ligand tijdens de receptorpreparatie werden verwijderd. De natuurlijke celecoxib-conformatie werd afzonderlijk uit keten A geëxtraheerd voor redocking-validatie. Polaire waterstofatomen en Gasteiger-ladingen werden toegevoegd met AutoDockTools, en de receptor werd opgeslagen in PDBQT-formaat. PDB ID 3LN1 is een 2,40 Å structuur van murine COX-2 gebonden aan celecoxib. De structuren van β-sitosterol en linoleylacetaat werden verkregen via PubChem en geprepareerd met Open Babel. Waterstofatomen en Gasteiger-partiële ladingen werden toegevoegd, roteerbare bindingen werden toegewezen en elk ligand werd geconverteerd naar PDBQT-formaat. Celecoxib, β-sitosterol en linoleylacetaat werden gedockt met AutoDock Vina met behulp van dezelfde receptor en zoekparameters.
De dockingbox werd gecentreerd op de natuurlijke celecoxib-bindingsregio met behulp van de volgende coördinaten: center_x = 30.9886 center_y = -22.2836 center_z = -16.5072 size_x = 26 Å size_y = 26 Å size_z = 26 Å. De exhaustiveness-waarde werd ingesteld op 16, het aantal output-modi op 10 en het energiebereik op 3 kcal/mol. De best gerangschikte pose, gebaseerd op de laagste voorspelde bindingsenergie, werd behouden voor visualisatie. Voor de validatie van het protocol werd natuurlijk celecoxib onder dezelfde omstandigheden opnieuw gedockt, waarna de root mean square deviation van de zware atomen tussen de kristallografische en de opnieuw gedockte poses werd berekend met PyMOL. Een root mean square deviation van minder dan 2 Å werd beschouwd als een acceptabele reproductie van de referentiepose. Residuen die zich binnen 4 Å van elk gedockt ligand bevonden, werden geïdentificeerd in PyMOL. Dockingscores en poses werden geïnterpreteerd als schattingen van de structurele compatibiliteit en niet als direct bewijs voor doelbinding of enzymatische remming.
Celkweek en preparatie van verbindingen
HBZY-1 rat glomerulaire mesangiale cellen werden gekweekt in high-glucose Dulbecco’s modified Eagle medium aangevuld met 10% foetaal runderserum en 1% penicilline-streptomycine bij 37 °C onder bevochtigde omstandigheden met 5% CO₂. Cellen in passages 2–7 werden gebruikt voor alle experimenten, en de mycoplasmavrije status werd vóór gebruik geverifieerd. β-Sitosterol en celecoxib dienden als chemisch gedefinieerde verbindingen. β-Sitosterol werd opgelost in absolute ethanol om een 10 mM voorraadoplossing te genereren (ongeveer 4,15 mg/mL). Indien nodig werden korte sonicatie en opwarming tot 50–60 °C uitgevoerd om een visueel heldere oplossing te verkrijgen. Celecoxib werd opgelost in dimethylsulfoxide om een 10 mM voorraadoplossing te bereiden (ongeveer 3,81 mg/mL). De voorraadoplossingen werden in aliquots verdeeld en bewaard bij −20 °C. Vóór de behandeling werden de voorraden direct verdund in voorverwarmd kweekmedium en onmiddellijk gemengd.
De concentraties van het oplosmiddel werden binnen elk experiment gelijkgetrokken. In de assay voor celviabiliteit werd de uiteindelijke ethanolconcentratie in alle groepen aangepast naar 0,2% v/v, aangezien de hoogste geteste β-sitosterolconcentratie 20 µM was. In het experiment naar LPS-geïnduceerde ontsteking werden de uiteindelijke concentraties van ethanol en dimethylsulfoxide in alle groepen respectievelijk aangepast naar 0,1% en 0,01% v/v. In het experiment naar TGF-β1-geïnduceerde profibrotische effecten werd de uiteindelijke ethanolconcentratie in alle groepen aangepast naar 0,1% v/v. Gelijkwaardige volumes van de overeenkomstige oplosmiddelen werden toegevoegd aan de Controle-, LPS- en TGF-β1-groepen.
Celviabiliteitsassay
Cellen werden uitgeplaat in 96-wells platen met een dichtheid van 5 × 10³ cellen per well in 100 µL compleet medium en kregen 24 h de tijd om te hechten. Om het concentratiebereik van β-sitosterol te bepalen, werden de cellen 24 h geïncubeerd met 0,5, 1, 5, 10 of 20 µM β-sitosterol. Voor de LPS-gerelateerde celviabiliteitsassay werden de cellen 2 h voorbehandeld met β-sitosterol in concentraties van 1, 5 of 10 µM, gevolgd door blootstelling aan 1 µg/mL lipopolysaccharide gedurende nog eens 24 h.
De behandelingsgroepen waren Controle, β-sitosterol bij 0,5 µM, β-sitosterol bij 1 µM, β-sitosterol bij 5 µM, β-sitosterol bij 10 µM, β-sitosterol bij 20 µM, LPS, LPS plus β-sitosterol bij 1 µM, LPS plus β-sitosterol bij 5 µM en LPS plus β-sitosterol bij 10 µM. Cell Counting Kit-8 reagens werd toegevoegd in een volume van 10 µL per putje, waarna de platen gedurende 2 h werden geïncubeerd. De absorptie werd vervolgens gemeten bij 450 nm. De celviabiliteit werd bepaald na aftrek van de celvrije blanco en uitgedrukt relatief aan de Controlegroep. Voor elke conditie werden zes technische putjes gebruikt in elk van de zes onafhankelijke biologische experimenten. De waarden van de technische putjes uit elk experiment werden gemiddeld om één biologische replica-waarde te genereren voor statistische analyse.
LPS-geïnduceerde inflammatoire activatie
Voor experimenten naar inflammatoire activatie werden HBZY-1-cellen geplaatst in 6-wells platen met een dichtheid van 2 × 10⁵ cellen per well en behandeld nadat een confluentie van ongeveer 70%–80% was bereikt. De cellen werden 12 u vóór de behandeling aangehouden in medium aangevuld met 1% foetaal runderseerum. β-Sitosterol of celecoxib werd 2 u vóór de LPS-stimulatie toegediend. Vervolgens werden de cellen 24 u lang blootgesteld aan 1 µg/mL LPS.
De experimentele groepen waren Controle, β-sitosterol bij 10 µM, LPS, LPS plus β-sitosterol bij 1 µM, LPS plus β-sitosterol bij 5 µM, LPS plus β-sitosterol bij 10 µM en LPS plus celecoxib bij 1 µM. Celecoxib werd toegevoegd als functionele positieve controle voor de remming van de COX-2-afhankelijke prostaglandineproductie. Aan het einde van de behandeling werden de cultuursupernatanten verzameld voor de meting van PGE2. Cellen werden afzonderlijk verzameld voor kwantitatieve real-time PCR-analyse van Tnf, Il6 en Ptgs2 en voor western blot-analyse van COX-2.
TGF-β1-geïnduceerde profibrotische activatie
Een apart TGF-β1-geïnduceerd model werd gebruikt om de profibrotische activatie te beoordelen. HBZY-1-cellen werden uitgeplaat in 6-wells platen met een dichtheid van 2 × 10⁵ cellen per well en gedurende 12 u vóór de behandeling onderhouden in medium aangevuld met 1% foetaal runderserum. De cellen werden 2 u voorbehandeld met β-sitosterol, gevolgd door stimulatie met 10 ng/mL recombinant TGF-β1 gedurende 48 u.
De behandelingsgroepen bestonden uit Controle, β-sitosterol (10 µM), TGF-β1, TGF-β1 + β-sitosterol (5 µM) en TGF-β1 + β-sitosterol (10 µM). Aan het einde van de behandelingsperiode werden de cellen geoogst voor kwantitatieve real-time PCR-analyse van Col1a1 en Acta2 en voor western blot-analyse van alfa-gladspieractine (α-SMA).
Kwantitatieve real-time PCR
Totaal RNA werd geïsoleerd uit behandelde cellen met een RNA-extractiereagens op basis van fenol-guanidinium volgens het protocol van de fabrikant. De RNA-concentratie en -zuiverheid werden bepaald met een spectrofotometer. Alleen monsters met een A260/A280-ratio van 1,8–2,0 werden gebruikt voor reverse transcriptie. Voor elk monster werd 1 µg totaal RNA getranskribeerd naar complementair DNA in een finaal reactievolume van 20 µL. Het resulterende complementaire DNA werd vijf keer verdund met nucleasevrij water voorafgaand aan de kwantitatieve PCR. Kwantitatieve PCR werd uitgevoerd in een totaal volume van 20 µL bestaande uit 10 µL 2× SYBR Green master mix, telkens 0,4 µL van 10 µM forward- en reverse-primers, 2 µL verdund complementair DNA en 7,2 µL nucleasevrij water. De amplificatiecondities bestonden uit een initiële denaturatiestap bij 95 °C gedurende 30 s, gevolgd door 40 cycli van denaturatie bij 95 °C gedurende 5 s en annealing-extensie bij 60 °C gedurende 30 s. Vervolgens werd een smeltcurve-analyse uitgevoerd van 65 °C tot 95 °C om de amplificatiespecificiteit te verifiëren.
De gemeten genen waren Tnf, Il6, Ptgs2, Col1a1, Acta2 en Gapdh. Gapdh diende als het interne referentiegen. De relatieve genexpressie werd bepaald met de 2−ΔΔCt methode, waarbij de controlegroep als calibrator werd gebruikt. De primersequenties zijn opgenomen in Aanvullende Tabel 1. Elk monster werd in technisch triplikaat geanalyseerd, en er werden zes onafhankelijke biologische experimenten uitgevoerd. De waarden verkregen uit de technische replica's werden gemiddeld voorafgaand aan de statistische analyse.
PGE2-meting via enzyme-linked immunosorbent assay
Kweeksupernatanten werden verzameld na 24 u LPS-stimulatie en gecentrifugeerd bij 1,000 × g gedurende 10 min bij 4 °C om celresten te verwijderen. PGE2-concentraties werden bepaald met behulp van een commercieel verkrijgbare enzyme-linked immunosorbent assay-kit volgens de instructies van de fabrikant.
Standaarden en monsters werden in dubbeltoets op de assayplaat geladen. Na voltooiing van de antilichaambindings- en kleurontwikkelingsstappen werd de absorbentie bij 450 nm geregistreerd met een microplaatlezer. PGE2-concentraties werden bepaald aan de hand van een vierparameter logistische standaardcurve en uitgedrukt in pg/mL. Supernatanten van zes onafhankelijke celexperimenten werden geanalyseerd. Dubbele metingen voor elk biologisch monster werden gemiddeld voorafgaand aan de statistische analyse.
Western blotting
Behandelde cellen werden gelyseerd in radioimmunoprecipitatie-assaybuffer aangevuld met een protease-inhibitormengsel. De lysaten werden 30 min op ijs geïncubeerd en 15 min gecentrifugeerd bij 12,000 × g bij 4 °C. Proteïneconcentraties in de supernatanten werden bepaald met een bicinchonininezuur-proteïneassay. Gelijke hoeveelheden proteïne (30 µg per lane) werden gemengd met loadingbuffer en 5 min gedenatureerd bij 95 °C. Proteïnen uit de LPS-experimenten werden gescheiden op 10% sodiumdodecylsulfaat-polyacrylamidegels, terwijl die uit de TGF-β1-experimenten werden gescheiden op 12% gels. De gescheiden proteïnen werden vervolgens overgebracht op polyvinylideenfluoridmembranen.
De membranen werden geblokkeerd met 5% vetvrije melk in Tris-gebufferde zoutoplossing met 0,1% Tween 20 gedurende 1 u bij kamertemperatuur en vervolgens overnacht bij 4 °C geïncubeerd met primaire antilichamen tegen COX-2 (1:1000), α-SMA (1:1000) en GAPDH (1:5000). COX-2 werd geanalyseerd in monsters uit het LPS-experiment, terwijl α-SMA werd geanalyseerd in monsters uit het TGF-β1-experiment. Na het wassen werden de membranen 1 u bij kamertemperatuur geïncubeerd met mierik wortelperoxidase-geconjugeerde secundaire antilichamen (1:5000). Proteinebanden werden gevisualiseerd met behulp van een enhanced chemiluminescence substraat en vastgelegd met een chemiluminescentie-beeldvormingssysteem. De belichtingstijden waren ongeveer 10 s voor COX-2, 10 s voor α-SMA en 2 s voor GAPDH.
Bandintensiteiten werden gekwantificeerd met ImageJ. COX-2 en α-SMA signalen werden genormaliseerd ten opzichte van het overeenkomstige GAPDH signaal. Western blotting werd uitgevoerd met eiwitmonsters verkregen uit zes onafhankelijke celkweek- en behandelingsexperimenten.
Statistische analyse
Statistische analyses werden uitgevoerd met GraphPad Prism. De gegevens worden weergegeven als het gemiddelde ± standaarddeviatie. Voor elke kwantitatieve analyse werden zes onafhankelijke celkweek- en behandelingsexperimenten uitgevoerd, waarbij elk onafhankelijk experiment één biologisch replica vertegenwoordigde. Technische replica-metingen verkregen uit hetzelfde biologische experiment werden gemiddeld vóór de statistische analyse en werden niet als onafhankelijke waarnemingen beschouwd.
Voor de celviabiliteitsassay bestond elk biologisch experiment uit zes technische wells per conditie. Kwantitatieve PCR-reacties werden in technisch triplikaat uitgevoerd voor elk biologisch monster, en PGE2-metingen werden in dubbeltoestanden uitgevoerd. De kwantificering van de Western blot was gebaseerd op zes onafhankelijk voorbereide eiwitmonsters. Bijgevolg bevat elke kwantitatieve staaf zes individuele biologische replicaatwaarden.
Verschillen tussen meerdere groepen werden geanalyseerd met behulp van eenweg-variantieanalyse, gevolgd door de Tukey-toets voor meervoudige vergelijkingen. Een tweezijdige P-waarde < 0,05 werd beschouwd als statistisch significant. Individuele biologische replica-waarden werden samen met het gemiddelde en de standaardafwijking weergegeven.
Resultaten
Screening van potentiële bestanddelen, ophalen van targets en target-intersectie
De workflow voor het identificeren van kandidaat-verbinding-ziekte overlapdoelwitten is samengevat in Figuur 1A. Zeven kandidaat-verbindingen van C. sinensis voldeden aan de vooraf gedefinieerde screeningscriteria van OB ≥30% en DL ≥0,18, waaronder arachidonzuur, linoleylacetaat, β-sitosterol, peroxyergosterol, cerevisterol, cholesterylpalmitaat en CLR (Tabel 2). Parallel daaraan werden 1.134 met glomerulonefritis geassocieerde genen opgehaald uit GeneCards, DisGeNET, PharmGKB en TTD, en hun distributie over de vier databases wordt getoond in Figuur 1B. Een intersectieanalyse tussen de set met verbinding-geassocieerde doelwitten en de set met ziekte-geassocieerde genen identificeerde 23 overlapdoelwitten (Tabel 1, Figuur 1C). Het corresponderende netwerk van verbinding-overlapdoelwitten wordt gepresenteerd in Figuur 1D, waarin de relaties tussen representatieve kandidaat-verbindingen, overlapdoelwitten en CGN worden geïllustreerd. Deze overlapdoelwitten bevatten verschillende genen gerelateerd aan ontstekingsregulatie, apoptose en vasculair geassocieerde signalering, zoals PTGS2, CASP3, MAPK1, PPARG, TNFRSF1A en NOS3.
Functionele verrijkings- en eiwit-eiwitinteractieanalyses
Om de biologische significantie van de 23 overlappende targets te onderzoeken, werden GO- en KEGG-pathway-enrichmentanalyses uitgevoerd. De resultaten onthulden dat deze targets significant verrijkt zijn in meerdere ontstekings- en metabolisme-gerelateerde pathways.
De GO-analyse classificeerde de targets in de categorieën biologisch proces (BP), cellulaire component (CC) en moleculaire functie (MF). De meest significant verrijkte BP-termen omvatten de respons op lipopolysacharide, de respons op moleculen van bacteriële oorsprong en de regulatie van processen van het spierstelsel. Op cellulair niveau waren targets verrijkt in membraanvlotten, caveolae en compartimenten van bloedplaatjes alpha-granula, terwijl MF-termen zoals oxidoreductase-activiteit en binding aan nucleaire receptoren verder wezen op rollen bij oxidatieve stress en transcriptionele regulatie (Figuur 2A).
KEGG-analyse onthulde dat de lipiden- en atherosclerose-route (hsa05417) het meest significant verrijkt was (q-waarde <1 × 10⁻⁶), samen met routes zoals AGE–RAGE-signalering bij diabetische complicaties, TNF-signalering, IL-17-signalering en HIF-1-signalering (Figuur 2B). Opvallend is dat de lipiden- en atherosclerose-route 10 van de 23 targets omvatte, waaronder CASP3, MAPK1, PPARG, NOS3 en TNFRSF1A.
Collectief geven deze verrijkingsresultaten aan dat de overlappende targets functioneel geassocieerd zijn met inflammatoire, stress-respons en endotheel-gerelateerde biologische processen die relevant zijn voor CGN.
Analyse van eiwit-eiwitinteractienetwerken
Voor de 23 overlappende targets werd een proteïne-proteïne interactienetwerk (PPI) geconstrueerd met behulp van STRING, wat resulteerde in een netwerk bestaande uit 23 knooppunten en 102 verbindingen (Figuur 3A). Topologische analyse met CytoNCA identificeerde negen sterk verbonden hub-targets: PTGS2, MAPK1, PPARG, CASP3, EGF, JUN, PECAM1, BCL2 en PRKCA (Figuur 3B). Van deze targets vertoonde PTGS2 een prominente netwerkcentraliteit en werd daarom geselecteerd voor een daaropvolgende moleculaire docking-analyse. Deze resultaten benadrukken een subset van netwerk-geprioriteerde kandidaatregulatoren die potentieel relevant zijn voor de intersectie tussen verbinding en ziekte.
Moleculaire Docking en Redocking-Validatie
Om de structurele plausibiliteit van de met PTGS2 geassocieerde kandidaatrelaties die via netwerkanalyse waren geïdentificeerd verder te evalueren, werd moleculaire docking uitgevoerd met behulp van een COX-2-structuur gebonden aan celecoxib. De kristalstructuur PDB ID 3LN1 werd geselecteerd omdat deze celecoxib bevat dat gebonden is aan de actieve site van COX-2, wat een experimenteel gedefinieerde ligand-bindingspocket biedt voor docking-validatie. Het co-gekristalliseerde celecoxib-ligand werd eerst geëxtraheerd en opnieuw gedockt in dezelfde bindingspocket. De redocked celecoxib-pose reproduceerde nauwgezet de kristallografische pose, met een redocking root mean square deviation (RMSD) van 0,876 Å en een voorspelde bindingsaffiniteit van -12,3 kcal/mol (Figuur 4A). Dit resultaat gaf aan dat het docking-protocol in staat was om de bekende ligand-bindingspose te reproduceren onder de geselecteerde docking-condities.
Met gebruik van dezelfde receptor, gridbox en docking-parameters werd β-sitosterol gedockt in de door celecoxib gedefinieerde COX-2 bindingsregio. β-sitosterol vertoonde een voorspelde bindingsaffiniteit van -7,2 kcal/mol (Figuur 4B). De gedockte pose bevond zich binnen de vooraf gedefinieerde COX-2 docking-regio, en de residuen rondom de gedockte β-sitosterol pose omvatten ASN567, ASP333, GLN178, GLN336, GLY340, HIS337, HIS80, PRO500, THR79 en TYR341.
Linoleylacetaat werd ook geëvalueerd als een secundaire computationele kandidaat omdat het bewaard was gebleven in de lijst met kandidaat-bestanddelen en in de netwerkanalyse gekoppeld was aan PTGS2. Onder dezelfde dockingcondities vertoonde linoleylacetaat een voorspelde bindingsaffiniteit van -7,5 kcal/mol, wat iets gunstiger was dan die van β-sitosterol (Figuur 4C). De voorspelde pose was gepositioneerd dicht bij het referentieligand celecoxib binnen het dockinggebied. De residuen rondom linoleylacetaat omvatten ALA502, ALA513, ARG106, ARG499, GLN178, GLY512, HIS75, ILE503, LEU338, LEU345, LEU517, MET508, PHE504, SER339, SER516, TRP373, TYR371, VAL102, VAL335 en VAL509.
Cellevensvatbaarheid, inflammatoire activatie en profibrotische activatie
β-sitosterol werd geselecteerd voor validatie op verbindingsniveau omdat het in de netwerkanalyse werd geïdentificeerd als een PTGS2-geassocieerde kandidaat en omdat er eerder experimentele ondersteuning was voor anti-inflammatoire en anti-fibrotische activiteit. De celviabiliteit werd eerst beoordeeld om het concentratiebereik te bepalen dat geschikt was voor daaropvolgende experimenten. Behandeling met β-sitosterol bij 0,5, 1, 5 en 10 µM verminderde de celviabiliteit niet merkbaar in vergelijking met de controlegroep, terwijl 20 µM β-sitosterol een lichte afname veroorzaakte. Blootstelling aan LPS verminderde de celviabiliteit, en gelijktijdige behandeling met β-sitosterol verbeterde de celviabiliteit onder LPS-stimulatie gedeeltelijk, waarbij het meest evidente effect werd waargenomen bij 10 µM (Figuur 5A). Op basis van deze resultaten werden 1, 5 en 10 µM β-sitosterol gebruikt voor de volgende experimenten naar LPS-geïnduceerde inflammatoire activatie.
LPS-stimulatie verhoogde de mRNA-expressie van inflammatoire genen in HBZY-1-cellen aanzienlijk. In vergelijking met de controlegroep vertoonde de LPS-groep hogere expressieniveaus van Tnf, Il6 en Ptgs2 (Figuur 5B-D). Behandeling met β-sitosterol verminderde de LPS-geïnduceerde upregulatie van deze genen op een concentratieafhankelijke wijze. De remmende trend was het meest duidelijk in de groep met LPS plus 10 µM β-sitosterol. Celecoxib, dat werd ingezet als functionele COX-2-remmercontrole, verminderde de expressie van inflammatoire genen ook tot zekere hoogte, hoewel het effect minder uitgesproken was dan dat waargenomen met 10 µM β-sitosterol voor verschillende transcriptionele markers (Figuur 5B-D).
Omdat Ptgs2 codeert voor COX-2, en PGE2 een belangrijk downstream prostaglandineproduct is van COX-2-activiteit, werd de PGE2-secretie gemeten via ELISA. LPS-behandeling verhoogde de PGE2-concentratie in het cultuursupernatans in vergelijking met de controlegroep. β-sitosterol verlaagde de LPS-geïnduceerde PGE2-productie op een concentratieafhankelijke wijze. Celecoxib reduceerde eveneens de PGE2-productie en diende als positieve controle voor functionele inhibitie van de COX-2/PGE2-as (Figuur 5E). Western blot-analyse toonde verder aan dat LPS de abundantie van het COX-2-eiwit verhoogde. Behandeling met β-sitosterol reduceerde de COX-2-eiwitniveaus onder LPS-stimulatie, waarbij een sterkere reductie werd waargenomen bij de hogere concentratie. In contrast hiermee reduceerde celecoxib de PGE2-productie, maar vertoonde het een beperkter effect op de abundantie van het COX-2-eiwit (Figuur 5F).
Om het door LPS geïnduceerde ontstekingmodel aan te vullen, werd een door TGF-β1 geïnduceerd profibrotisch activatiemodel gebruikt om vast te stellen of β-sitosterol de expressie van fibrotische markers in mesangiale cellen beïnvloedde. TGF-β1 verhoogde de mRNA-expressie van Col1a1 en Acta2 aanzienlijk in vergelijking met de controlegroep (Figuur 6A,B). β-sitosterol verminderde de door TGF-β1 geïnduceerde toename van beide markers, waarbij de afname duidelijker was bij 10 µM dan bij 5 µM (Figuur 6A,B). Western blot-analyse toonde een overeenkomstige toename van de α-SMA-proteïne-expressie na TGF-β1-stimulatie, terwijl behandeling met β-sitosterol de hoeveelheid α-SMA-proteïne in TGF-β1-behandelde cellen verlaagde (Figuur 6C).
DATAbeschikbaarheid:
De ruwe en verwerkte gegevens ter ondersteuning van deze studie zijn gedeponeerd in Zenodo onder DOI: https://zenodo.org/records/21649482. De volledige scan-afbeeldingen van de western blot zijn opgenomen in Aanvullend Bestand 1.
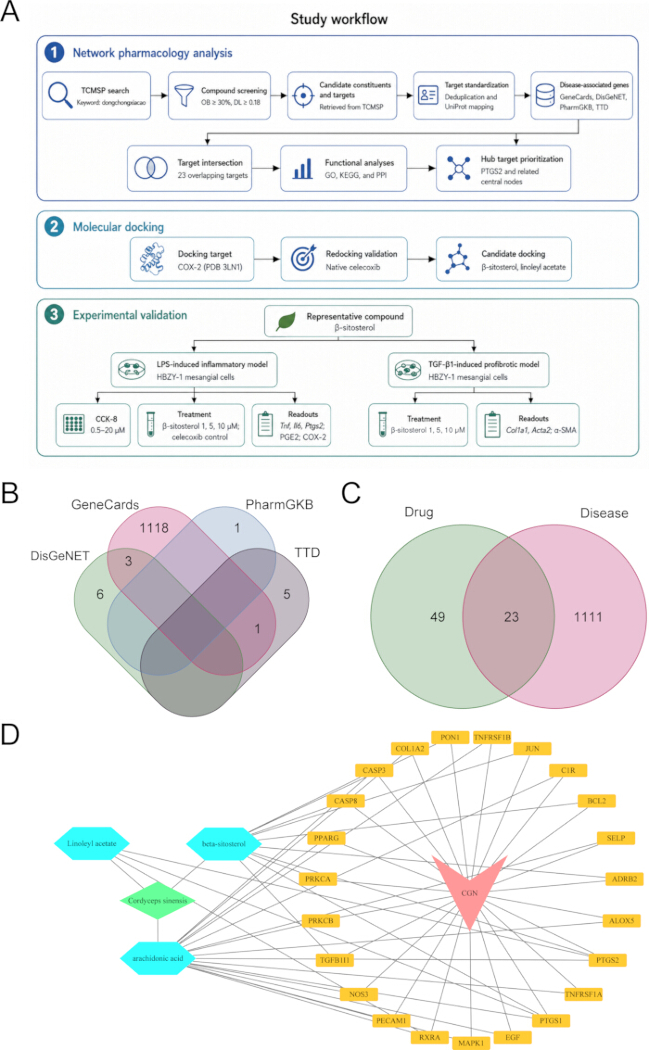
Figuur 1. Workflow en netwerkgebaseerde identificatie van kandidaat-verbindingen en overlappende targets voor ziekten van C. sinensis bij glomerulonefritis. (A) Schematische workflow die de identificatie van kandidaat-verbindingen, het ophalen en standaardiseren van targets geassocieerd met verbindingen, het ophalen van genen geassocieerd met glomerulonefritis, de intersectieanalyse en de constructie van het netwerk van verbindingen en overlappende targets laat zien. (B) Venn-diagram dat de distributie illustreert van genen geassocieerd met glomerulonefritis, opgehaald uit GeneCards, DisGeNET, PharmGKB en TTD. (C) Venn-diagram dat de overlap toont tussen targets geassocieerd met verbindingen afkomstig uit TCMSP en ziekte-geassocieerde genen, wat resulteerde in 23 overlappende targets. (D) Netwerk van verbindingen en overlappende targets. De groene ruit vertegenwoordigt C. sinensis, blauwe hexagonen geven kandidaat-verbindingen aan, gele cirkels geven overlappende targets aan en de roze driehoek vertegenwoordigt CGN. De randen geven de overeenkomstige relaties tussen verbinding-target of ziekte-target aan. Klik hier om een grotere versie van deze figuur te bekijken.
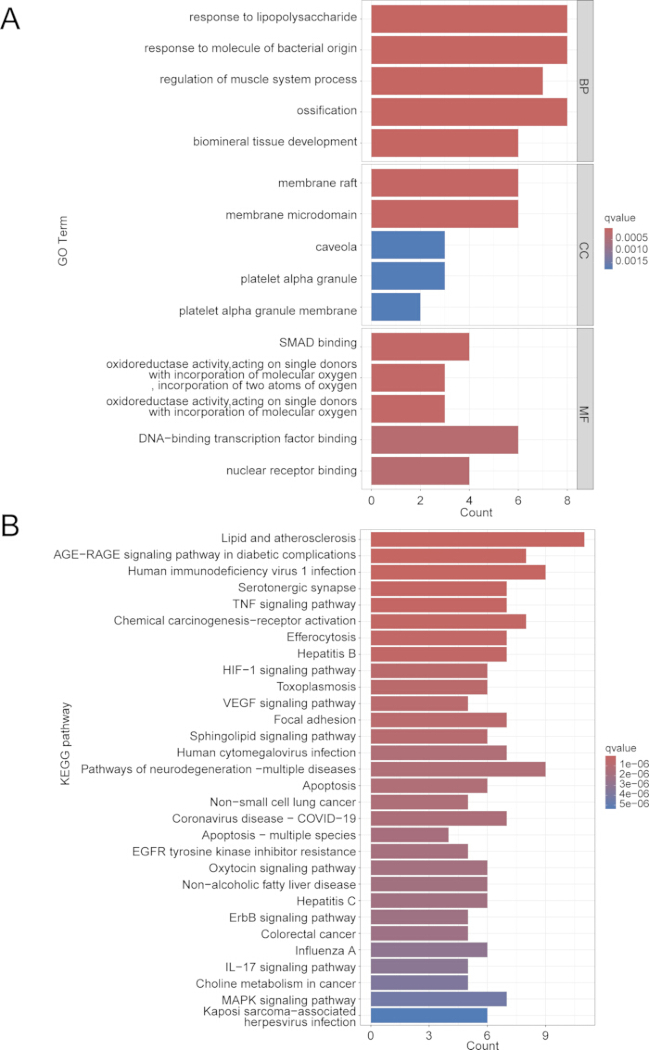
Figuur 2. Functionele verrijkingsanalyse van de overlappende targets. (A) GO-verrijkingsanalyse van de 23 overlappende targets. De belangrijkste BP-, CC- en MF-termen werden geïdentificeerd. De lengte van de balk geeft het aantal genen aan; de kleurgradiënt representeert de q-waarde. (B) KEGG-verrijkingsanalyse van de 23 overlappende targets. De pathways zijn gerangschikt op basis van het aantal genen en de statistische significantie. Klik hier om een grotere versie van deze figuur te bekijken.
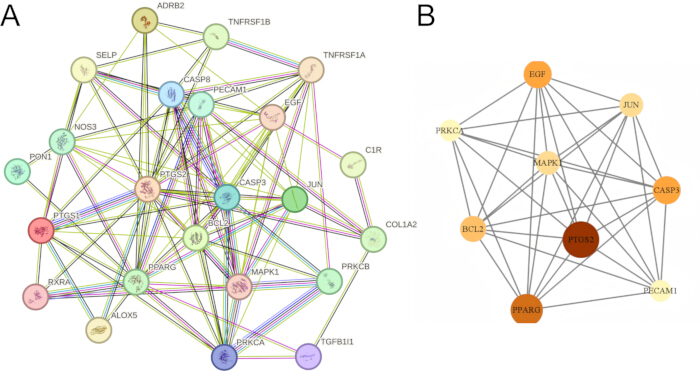
Figuur 3. Proteïne-proteïne-interactienetwerk en prioritering van hub-doelwitten van de overlappende doelwitten. (A) PPI-netwerk geconstrueerd uit de 23 overlappende doelwitten met STRING met een interactiescore-drempelwaarde >0,4. (B) De negen belangrijkste hub-doelwitten zijn geprioriteerd via netwerktopologieanalyse op basis van CytoNCA. PTGS2 vertoonde een prominente netwerkcentraliteit en werd geselecteerd voor daaropvolgende moleculaire docking-analyse. Klik hier om een grotere versie van deze figuur te bekijken.
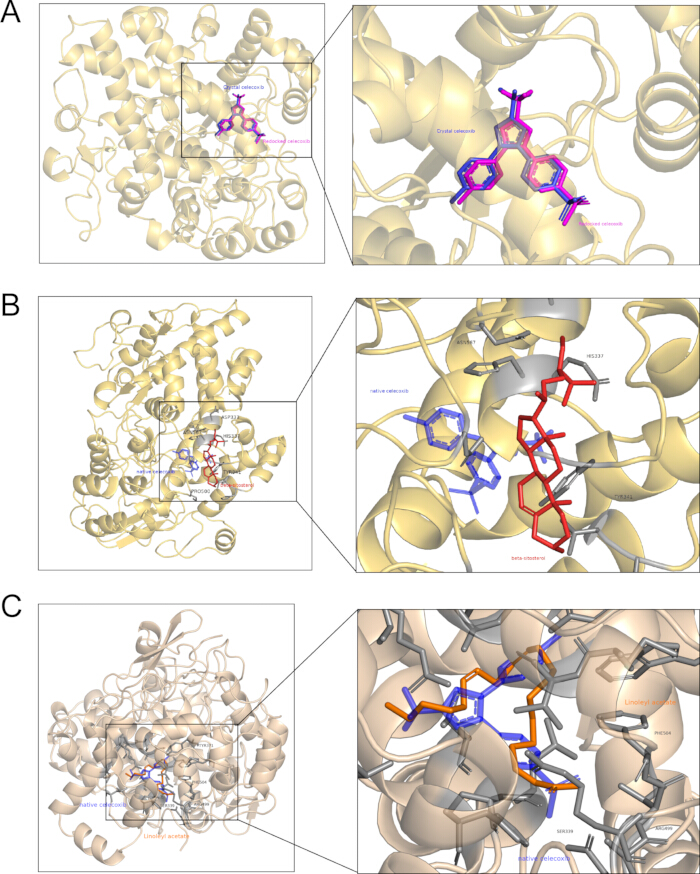
Figuur 4. Moleculaire docking en redocking-validatie van geselecteerde kandidaatverbindingen met COX-2. (A) Superpositie van de kristallografische celecoxib-pose en de hoogst gerangschikte redocked pose in de celecoxib-gebonden muis COX-2 structuur (PDB ID 3LN1). Redocking reproduceerde de experimentele bindingsoriëntatie. (B) Hoogst gerangschikte docking pose van β-sitosterol binnen de door celecoxib gedefinieerde COX-2 dockingregio. De kristallografische celecoxib-pose is opgenomen als ruimtelijke referentie. (C) De hoogst gerangschikte docking pose van linoleylacetaat binnen dezelfde dockingregio. Klik hier om een grotere versie van deze figuur te bekijken.
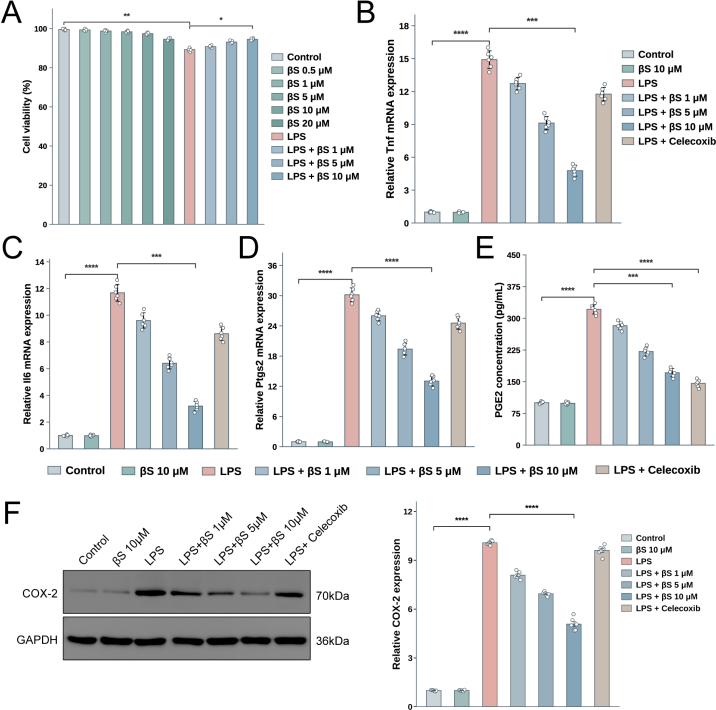
Figuur 5. β-Sitosterol vermindert LPS-geïnduceerde inflammatoire activatie en PGE2-productie in HBZY-1 mesangiale cellen. (A) De celviabiliteit werd gemeten met de Cell Counting Kit-8-assay. Cellen werden 24 u behandeld met β-sitosterol in concentraties van 0,5, 1, 5, 10 of 20 µM. In de LPS-gestimuleerde groepen werden de cellen 2 u voorblootgesteld aan β-sitosterol in concentraties van 1, 5 of 10 µM vóór blootstelling aan 1 µg/mL LPS gedurende 24 u. De celviabiliteit werd uitgedrukt relatief ten opzichte van de controlegroep. (B–D) Kwantitatieve real-time PCR-analyse van de mRNA-expressie van Tnf (B), Il6 (C) en Ptgs2 (D). De genexpressie werd genormaliseerd ten opzichte van Gapdh en uitgedrukt relatief ten opzichte van de controlegroep. (E) PGE2-concentraties in cultuursupernatanten, gemeten via enzyme-linked immunosorbent assay. Celecoxib werd gebruikt als functionele positieve controle voor de onderdrukking van COX-2-afhankelijke prostaglandineproductie. (F) Representatieve western blot-afbeeldingen van COX-2 en GAPDH in de aangegeven behandelingsgroepen. Gegevens worden gepresenteerd als gemiddelde ± SD van zes onafhankelijke biologische experimenten, waarbij individuele biologische replica-waarden worden getoond. Waarden van technische replica's werden gemiddeld vóór de analyse. Vergelijkingen werden uitgevoerd met behulp van eenweg-ANOVA gevolgd door de multiple-comparison test van Tukey. Significantie wordt aangegeven door haakjes in de afzonderlijke panelen: *P < 0,05, **P < 0,01, ***P < 0,001 en ****P < 0,0001. Klik hier om een grotere versie van deze figuur te bekijken.
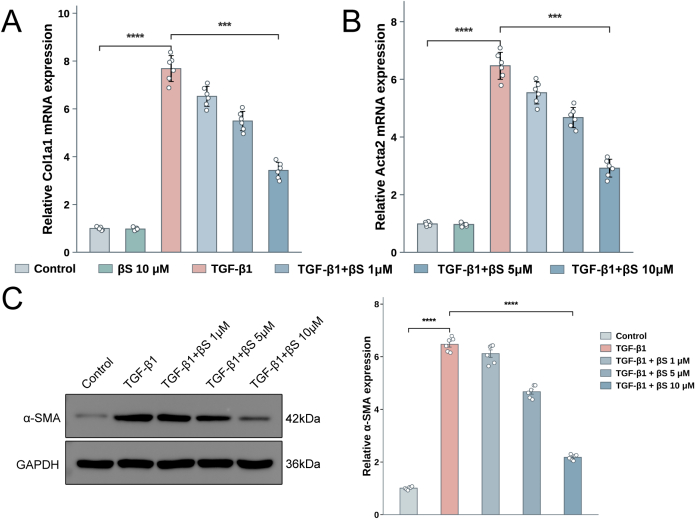
Figuur 6. β-Sitosterol vermindert de TGF-β1-geïnduceerde expressie van profibrotische markers in HBZY-1 mesangiale cellen. (A–B) Kwantitatieve real-time PCR-analyse van Col1a1 (A) en Acta2 (B) mRNA-expressie. Genexpressie werd genormaliseerd naar Gapdh en uitgedrukt relatief ten opzichte van de controlegroep. (C) Representatieve western blot-afbeeldingen van α-SMA en GAPDH in de aangegeven behandelingsgroepen. Gegevens worden gepresenteerd als gemiddelde ± SD van zes onafhankelijke biologische experimenten, waarbij individuele biologische replicaatwaarden worden getoond. Technische replicaatwaarden werden gemiddeld voor analyse. Vergelijkingen werden uitgevoerd met behulp van een eenweg-ANOVA gevolgd door de multiple-comparison test van Tukey. Significantie wordt aangegeven door haakjes in de afzonderlijke panelen: *P < 0.05, **P < 0.01, ***P < 0.001, en ****P < 0.0001. Klik hier om een grotere versie van deze figuur te bekijken.
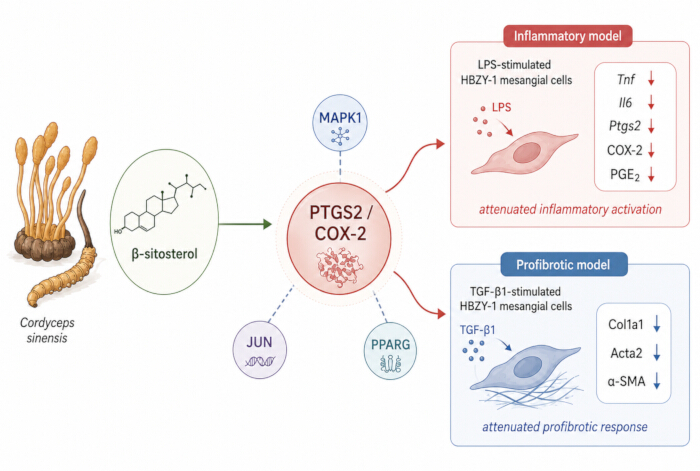
Figuur 7. Geïntegreerde interpretatie van β-sitosterol-geassocieerde inflammatoire en profibrotische responsen in HBZY-1 cellen. Netwerk- en docking-analyses gaven prioriteit aan PTGS2/COX-2 binnen een bredere context die MAPK1, JUN en PPARG omvatte. Behandeling met β-sitosterol was geassocieerd met reducties in LPS-geïnduceerde expressie van Tnf, Il6 en Ptgs2, de hoeveelheid COX-2 eiwit en de productie van PGE2, evenals reducties in TGF-β1-geïnduceerde expressie van Col1a1, Acta2 en α-SMA. Klik hier om een grotere versie van deze figuur te bekijken.
| Nee. | Overlappend doelwit | Kandidaatverbinding(en) geassocieerd met het target |
| 1 | PTGS1 | β-sitosterol; linoleylacetaat; arachidonzuur |
| 2 | PTGS2 | ββ-sitosterol; linoleylacetaat; arachidonzuur |
| 3 | CASP3 | β$\beta$-sitosterol; arachidonzuur |
| 4 | CASP8 | β-sitosterol |
| 5 | BCL2 | β-sitosterol |
| 6 | JUN | β-sitosterol |
| 7 | PON1 | β-sitosterol |
| 8 | PRKCA | β-sitosterol |
| 9 | TGFB1I1 | β-sitosterol |
| 10 | ADRB2 | β-sitosterol |
| 11 | RXRA | linoleylacetaat; arachidonzuur |
| 12 | TNFRSF1A | arachidonzuur |
| 13 | TNFRSF1B | arachidonzuur |
| 14 | ALOX5 | arachidonzuur |
| 15 | SELP | arachidonzuur |
| 16 | C1R | arachidonzuur |
| 17 | COL1A2 | arachidonzuur |
| 18 | PPARG | arachidonzuur |
| 19 | PRKCB | arachidonzuur |
| 20 | NOS3 | arachidonzuur |
| 21 | PECAM1 | arachidonzuur |
| 22 | MAPK1 | arachidonzuur |
| 23 | EGF | arachidonzuur |
Tabel 1: Overlapte doelen tussen met TCMSP afgeleide verbinding-geassocieerde doelen en glomerulonefritis-geassocieerde genen.Verbanden tussen verbindingen en doelen werden opgehaald uit TCMSP, handmatig gededupliceerd en gestandaardiseerd naar officiële menselijke gensymbolen met behulp van UniProt.
| Naam molecuul | MW | AlogP | OB (%) | Caco-2 | BBB | DL | FASA | HL |
| Arachidonzuur | 304.52 | 6.41 | 45.57 | 1.2 | 0.58 | 0.2 | 0.28 | 4.39 |
| Linoleylacetaat | 308.56 | 6.85 | 42.1 | 1.36 | 1.08 | 0.2 | 0.21 | 7.48 |
| β-sitosterol | 414.79 | 8.08 | 36.91 | 1.32 | 0.99 | 0.75 | 0.23 | 5.36 |
| Peroxyergosterol | 428.72 | 6.73 | 44.39 | 0.86 | 0.43 | 0.82 | 0.24 | 4.06 |
| Cerevisterol | 432.76 | 5.26 | 39.52 | 0.35 | -0.29 | 0.77 | 0.22 | 5.08 |
| Cholesterylpalmitaat | 625.19 | 14.35 | 31.05 | 1.45 | 0.68 | 0.45 | 0.18 | 7.93 |
| Cholesterol (CLR) | 386.73 | 7.38 | 37.87 | 1.43 | 1.13 | 0.68 | 0.2 | 4.52 |
Tabel 2: Kandidaat-bestanddelen van C. sinensis verkregen uit TCMSP met behulp van screeningcriteria voor orale biobeschikbaarheid en drug-likeness. Componenten met een orale biobeschikbaarheid van ten minste 30% en een drug-likeness van ten minste 0,18 werden behouden. MW, molecuulgewicht; ALogP, voorspelde octanol-water partitiecoëfficiënt; OB, orale biobeschikbaarheid; Caco-2, voorspelde Caco-2 permeabiliteit; BBB, penetratie van de bloed-hersenbarrière; DL, drug-likeness; FASA, fractioneel negatief toegankelijk oppervlak; HL, halfwaardetijd.
Aanvullende tabel 1. Primersequenties gebruikt voor kwantitatieve real-time PCR in HBZY-1 rat glomerulaire mesangiale cellen. Alle sequenties worden weergegeven in de 5′- naar 3′-richting.Klik hier om dit bestand te downloaden.
Aanvullend bestand 1. Volledige scanbeelden voor Western blot.Klik hier om dit bestand te downloaden.
Discussie
Deze studie integreerde netwerkfarmacologie, moleculaire docking gevalideerd met referentie-liganden en experimenten op verbindingsniveau om een hypothese geassocieerd met PTGS2 te onderzoeken, afgeleid van kandidaatbestanddelen van C. sinensis. Zeven bestanddelen voldeden aan de vooraf gedefinieerde TCMSP-screeningscriteria, en 23 targets overlapten met de genenset geassocieerd met glomerulonefritis. Protein-interactieanalyse prioriteerde negen centrale targets, waaronder PTGS2 werd geselecteerd voor docking en experimentele beoordeling. Redocking van celecoxib reproduceerde de kristallografische pose, terwijl β-sitosterol en linoleylacetaat een matige voorspelde compatibiliteit vertoonden met de COX-2 dockingregio. In HBZY-1 mesangiale cellen reduceerde β-sitosterol de LPS-geïnduceerde expressie van inflammatoire genen, de hoeveelheid COX-2 en de productie van PGE2, en verminderde het de TGF-β1-geïnduceerde expressie van profibrotische markers. Deze bevindingen verbinden computationele prioritering met cellulaire fenotypes, maar zij ondersteunen een potentiële regulerende relatie in plaats van een gedefinieerd therapeutisch mechanisme.
De resultaten van de verrijking plaatsten de overlappende targets binnen biologische processen die gerelateerd zijn aan inflammatoire stimulatie, cellulaire stress, lipidenregulatie, vasculaire functie en weefselremodellering. De verrijking van reacties op lipopolysachariden en bacteriële producten was consistent met het inflammatoire model dat werd gebruikt voor experimentele validatie. TNF-, IL-17-, AGE-RAGE- en HIF-1-gerelateerde pathways boden daarnaast een plausibele functionele context voor glomerulaire ontsteking en maladaptieve remodellering6,17,18,19. Desalniettemin weerspiegelt pathway-verrijking de statistische concentratie van geannoteerde genen en stelt het geen activatie of inhibitie van een pathway door β-sitosterol vast12. De prominente annotatie voor lipiden en atherosclerose moet daarom worden geïnterpreteerd als gedeelde inflammatoire, apoptotische en vasculaire biologie, en niet als bewijs dat atherosclerose het belangrijkste ziekteproces bij CGN vertegenwoordigt. Op dezelfde manier werden TCMSP-gebaseerde gegevens over orale biologische beschikbaarheid, drug likeness en targets gebruikt om kandidaten te prioriteren.
PTGS2 bleek een relevant knooppunt te zijn omdat het aanwezig was in de intersectie van verbindingen en ziekte, een hoge netwerkcentraliteit vertoonde en experimenteel werd gekoppeld aan veranderingen in de transcriptie van Ptgs2, de overvloed aan COX-2-eiwit en de PGE2-productie. Deze overeenstemming op zowel computationeel als cellulair niveau versterkt de rationale voor het onderzoeken van de PTGS2-geassocieerde respons. Dit impliceert echter niet dat PTGS2 uniform pathogeen is in de nier. COX-afgeleide prostanoiden nemen deel aan de renale bloedstroom, zouthantering en adaptieve homeostase, en kunnen beschermende of schadelijke effecten uitoefenen afhankelijk van het celtype, de receptorverdeling, de fase van de ziekte en de lokale concentratie20,21. Bij experimentele nefritis reduceerde celecoxib de PGE2-gerelateerde output, terwijl PGE2 zelf de expressie van prostaglandine-receptoren in mesangiale cellen beïnvloedde22. Deze observaties illustreren dat de biologische gevolgen van COX-2 en PGE2 verder gaan dan een eenvoudig lineair pro-inflammatoir pad20,23. Vergelijking met celecoxib helpt om target-expressie te onderscheiden van enzymfunctie. Celecoxib zorgde voor de duidelijkste reductie in PGE2, consistent met zijn rol als functionele COX-2-remmer, maar oefende een beperkter effect uit op de expressie van Ptgs2 en de overvloed aan COX-2-eiwit22. β-Sitosterol vertoonde een breder patroon dat een lagere waarde voor Tnf, Il6, Ptgs2, COX-2 en PGE2 omvatte. Dit verschil duidt niet op een superieure COX-2-remmende potentie. In plaats daarvan suggereert het dat β-sitosterol de inflammatoire toestand waarin PTGS2 wordt geïnduceerd kan veranderen, terwijl celecoxib primair de prostaglandinesynthese beperkt door remming van de katalytische activiteit. Directe enzymassays, target-engagement-studies en PTGS2-perturbatie zouden nodig zijn om te bepalen of β-sitosterol ook functioneel interacteert met COX-2.
De bevindingen uit het netwerk suggereren bovendien dat PTGS2 niet moet worden geïnterpreteerd als een geïsoleerde moleculaire knoop. MAPK1, JUN and PPARG werden samen geprioriteerd in het eiwitinteractienetwerk, waardoor de prostanoidsynthese in een bredere signalerings- en transcriptionele context wordt geplaatst. In renale mesangiale cellen verhoogde sfingosine-1-fosfaat de COX-2-expressie en PGE2-vorming via S1P-receptor 2-afhankelijke p42/p44 MAPK-signalering, wat direct bewijs levert dat MAPK-activiteit stroomopwaarts kan liggen van de COX-2/PGE2-respons in dit celtype24. Omdat JUN een hoofdcomponent is van het AP-1-transcriptiefactorcomplex, kan AP-1 een interface vormen tussen MAPK-activatie en PTGS2-transcriptie. In overeenstemming met deze mogelijkheid onderdrukte 15-deoxy-Δ12,14-prostaglandine J2 de IL-1β-geïnduceerde COX-2-expressie samen met de AP-1-activiteit in gecultiveerde mesangiale cellen25. In niet-renale cellulaire modellen reduceerde β-sitosterol de ERK- en p38-activatie, NF-κB-signalering, COX-2-expressie en de productie van inflammatoire cytokinen na blootstelling aan LPS14,15. Deze observaties bieden een plausibele context voor de gecoördineerde reducties in Tnf, Il6, Ptgs2, COX-2 en PGE2 die in de huidige studie zijn waargenomen. Echter, de geciteerde β-sitosterolstudies werden uitgevoerd in microgliaire of endotheliale cellen in plaats van renale mesangiale cellen, en MAPK1-fosforylering en JUN-activiteit werden hier niet gemeten. De huidige resultaten stellen daarom geen MAPK1-afhankelijk of JUN-afhankelijk mechanisme van PTGS2-regulatie door β-sitosterol vast. PPARG kan kruisen met het op PTGS2 gerichte netwerk via lipide-gevoelige transcriptionele regulatie en modulatie van het profibrotische fenotype van mesangiale cellen, in plaats van als een eenvoudige lineaire stroomafwaartse effector van PTGS2. In glomerulaire mesangiale cellen inhibeerden natuurlijke en synthetische PPARγ-liganden de TGF-β1-geïnduceerde fibronectine-expressie, terwijl apart onderzoek aantoonde dat PPARγ-agonisten de TGF-β-geïnduceerde mesangiale celactivatie, α-SMA-expressie en collagen IV-accumulatie reduceerden door attenuatie van PKA- en CREB-signalering26,27. Recentere studies bij diabetische muizen en met hoge glucose gestimuleerde glomerulaire mesangiale cellen plaatsten NF-κB/COX-2 en PPARγ/UCP2 binnen parallelle regulatoire assen geassocieerd met renale inflammatie en fibrose, wat wijst op mogelijke functionele convergentie zonder directe PTGS2-PPARG-koppeling aan te tonen28. Deze bevindingen bieden een biologisch plausibele context voor de reducties in Col1a1, Acta2 en α-SMA die zijn waargenomen in het huidige TGF-β1-model. De expressie, transcriptionele activiteit en ligandbinding van PPARG zijn echter niet geëvalueerd. De huidige gegevens kunnen de waargenomen profibrotische respons daarom niet toeschrijven aan PPARG-activatie of een sequentieel MAPK1-PTGS2-PPARG-signaleringspad definiëren. Belangrijk is dat MAPK1 en PPARG werden geprioriteerd op het niveau van het geïntegreerde verbinding-ziektenetwerk en op basis van de huidige analyse niet moeten worden geïnterpreteerd als directe β-sitosterol-doelen.
De docking-analyse moet binnen dezelfde bewijskaders worden geïnterpreteerd. Een redocking RMSD van 0,876 Å gaf aan dat het geselecteerde docking-protocol de bekende oriëntatie van celecoxib in de 3LN1-structuur kon reproduceren. De aanzienlijk minder gunstige voorspelde affiniteiten van β-sitosterol en linoleylacetaat in vergelijking met celecoxib ondersteunden de ruimtelijke accommodatie binnen de vooraf gedefinieerde regio, maar niet een gelijkwaardige bindingssterkte of farmacologische werking29,30. Het verschil van 0,3 kcal/mol tussen linoleylacetaat en β-sitosterol is te klein om op zichzelf een biologische rangschikking te rechtvaardigen. β-Sitosterol werd geselecteerd voor vervolgtests omdat de netwerkassociatie ervan gepaard ging met een bredere experimentele literatuur relevant voor ontsteking en fibrose14,15,16. Eerdere studies rapporteerden reducties in TNF-α, IL-6 en COX-2 in LPS-blootgestelde microgliacellen en endotheelcellen, samen met veranderingen in MAPK- en NF-κB-signalering14,15. Arachidonzuur vereist een andere interpretatie omdat het een endogeen COX-substraat is21. De aanwezigheid ervan in het uit TCMSP afgeleide netwerk wijst niet op een ontstekingsremmende inhiberende werking en illustreert dat op databases gebaseerde relaties tussen verbindingen en targets geen directionaliteit definiëren. De concentratiegerelateerde reducties in ontstekingsmarkers waargenomen in HBZY-1-cellen zijn consistent met deze eerdere cellulaire bevindingen, terwijl de bewijsvoering wordt uitgebreid naar een glomerulaire mesangiale context14,15. Het TGF-β1-model richtte zich op een apart aspect van het ziekteproces31. β-Sitosterol reduceerde de transcriptie van Col1a1 en Acta2 en verlaagde de abundantie van α-SMA na TGF-β1-stimulatie. Eerder werk in menselijke alveolaire epitheelcellen vond soortgelijk dat β-sitosterol de TGF-β1-geïnduceerde expressie van collageen, fibronectine en α-SMA reduceerde, hoewel die studie betrekking had op een ander weefsel en cellulair proces16. De huidige bevindingen ondersteunen derhalve activiteit tegen een profibrotisch fenotype in mesangiale cellen, maar stellen geen inhibitie van een specifieke TGF-β-receptor of SMAD-afhankelijk mechanisme vast31.
Verschillende beperkingen definiëren de reikwijdte van de interpretatie. De set ziektegenen werd gegenereerd met de brede term glomerulonefritis en is niet specifiek voor één klinisch of histologisch CGN-subtype. De computationele analyse maakte gebruik van menselijke annotaties, docking maakte gebruik van een muis-COX-2-structuur en experimenten werden uitgevoerd in rat HBZY-1-cellen. Orthologe relaties ondersteunen de vergelijking, maar soortafhankelijke verschillen in regulatie en ligandherkenning blijven mogelijk. Een enkele geïmmortaliseerde mesangiale cellijn kan de interacties tussen mesangiale cellen, podocyten, endotheelcellen, infiltrerende immuuncellen en het tubulo-interstitiële compartiment niet vertegenwoordigen. De studie evalueerde bovendien geen directe binding, COX-2 enzymatische activiteit, PTGS2-afhankelijkheid, primaire menselijke niercellen, in vivo werkzaamheid, farmacokinetiek of renale blootstelling. Ten slotte lost het testen van een gedefinieerde β-sitosterol-preparaat de eerdere inconsistentie op tussen de voorspelde bestanddelen en een ongekarakteriseerd extract, maar het stelt niet vast dat β-sitosterol verantwoordelijk is voor de effecten van volledige C. sinensis of dat andere bestanddelen inactief zijn.
Samen ondersteunen de netwerk-, docking- en celgebaseerde bevindingen β-sitosterol als een representatieve kandidaat die geassocieerd is met een verminderde inflammatoire en profibrotische activatie in HBZY-1-cellen. De resultaten zijn consistent met de modulatie van een PTGS2/COX-2/PGE2-gerelateerde respons, maar stellen geen directe COX-2-binding, PTGS2-afhankelijke causaliteit of therapeutische effectiviteit bij CGN vast. Verdere studies naar target-engagement, genetische perturbatie, primaire cellen en in vivo onderzoek zijn vereist (Figuur 7).
Openbaarmakingen
De auteurs verklaren dat zij geen concurrerende belangen hebben. Tools op basis van kunstmatige intelligentie (ChatGPT, OpenAI) werden gebruikt om te helpen bij de taalredactie en het voorlopige ontwerp van schematische figuren. Generatieve kunstmatige intelligentie werd gebruikt om te helpen bij het opstellen van voorlopige grafische concepten voor Figuren 1A en 7, welke vervolgens door de auteurs zijn beoordeeld en herzien om consistentie met de gerapporteerde methoden en resultaten te waarborgen. Alle door AI ondersteunde outputs zijn kritisch geëvalueerd en goedgekeurd door de auteurs. De auteurs hebben de uiteindelijke inhoud van de figuren geverifieerd en dragen de volledige verantwoordelijkheid voor de integriteit en nauwkeurigheid van het manuscript.
Dankbetuigingen
Deze studie werd ondersteund door de Integrated Traditional Chinese and Western Medicine Nephropathy Characteristic Specialty (ZYTSZK2-3) en de Study on TCM Intervention Strategy of Chronic Kidney Disease from the Perspective of Chronic Disease Management (202240169).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Absolute ethanol | Sigma-Aldrich/Merck | E7023 | 200 proof, niet-gedenatureerde ethanol van moleculaire biologie-kwaliteit; oplosmiddel voor β-sitosterol-stamoplossing. |
| AutoDock Vina | Scripps Research | Versie 1.1.2 | Moleculaire docking-simulatie |
| Veiligheidskast voor biologische agentia | Thermo Fisher Scientific | 1300 Serie A2 | Steriele celcultuurprocedures |
| Celecoxib | MedChemExpress | HY-14398 | Selectieve COX-2-remmer gebruikt als positieve controle; 10 mM stockoplossing in DMSO. |
| Cell Counting Kit-8 | Dojindo Molecular Technologies, Inc. | CK04 | WST-8 colorimetrische assay voor celviabiliteit; absorbantie gemeten bij 450 nm. |
| Chemiluminescentiesysteem voor beeldvorming | Bio-Rad Laboratories | ChemiDoc MP | Acquisitie van Western blot-beelden |
| clusterProfiler R-pakket | Bioconductor | Versie 4.10.0 | GO- en KEGG-verrijkingsanalyse |
| CO2 celkweekincubator | Thermo Fisher Scientific | Forma Series II 3111 | Celkweekincubatie bij 37 °C en 5% CO22 |
| COX-2 (D5H5) konijn monoklonaal antilichaam | Cel-signaaltechnologie | 12282 | Western blot gevalideerd voor humane, muizen- en raten COX-2; gebruikt in een verdunning van 1:1.000. |
| CytoNCA-plug-in | Cytoscape App Store | Versie 2.1.6 | Topologische analyse van hub-doelwitten |
| Cytoscape-software | Cytoscape Consortium | Versie 3.8.0 | Netwerkvisualisatie en -analyse |
| Dimethylsulfoxide | Sigma-Aldrich/Merck | D2650 | sterielgefilterd bioreagens, ≥99,7%; oplosmiddel voor celecoxib-stockoplossing. |
| DisGeNET-database | Integratieve Biomedische Informatica Groep | Niet van toepassing | Ziekte-gen-opvraging voor glomerulonefritis |
| Dulbecco's Modified Eagle Medium (DMEM) | Gibco/Thermo Fisher Scientific | C11995500BT | Basaal medium voor HBZY-1 celkweek |
| Verbeterd chemiluminescentiesubstraat | Beyotime Biotechnology | P0018S | Visualisatie van Western blot-banden |
| Foetaal runderserum | Gibco/Thermo Fisher Scientific | 10099-141C | Serumsupplement voor celkweek |
| GAPDH (D16H11) konijn monoklonaal antilichaam | Cell Signaling Technology | 5174 | Western blot-ladingscontrole; reactief met menselijke, muis- en rat-GAPDH; gebruikt in een verdunning van 1:5.000 na interne optimalisatie. |
| GeneCards-database | Weizmann Institute of Science | N/A | Identificatie van genen geassocieerd met glomerulonefritis |
| GraphPad Prism | GraphPad Software | Versie 9.0.0.121 | Statistische analyse van in vitro experimentele gegevens |
| HRP-geconjugeerd geiten anti-konijn IgG | Proteintech Group | SA00001-2 | Secundair antilichaam voor konijnen primaire antilichamen |
| ImageJ-software | National Institutes of Health | Versie 1.54 | Densitometrische analyse van Western blots |
| Inverted fasecontrastmicroscoop | Olympus | CKX53 | Observatie van celmorfologie |
| org.Hs.eg.db R-pakket | Bioconductor | Versie 3.18.0 | Humane genannotatie voor enrichmementanalyse |
| Penicilline-streptomycine-oplossing | Gibco/Thermo Fisher Scientific | 15140122 | Antibioticsupplement voor celkweek |
| PGE2 Parameter Assay Kit | R&D Systems, een merk van Bio-Techne | KGE004B | Multi-species competitieve ELISA voor celkweeksupernatanten; assaybereik 39–2.500 pg/mL; colorimetrische detectie bij 450 nm. |
| PharmGKB-database | Kennisbank voor Farmacogenomica | Niet beschikbaar | Opvragen van ziektegerelateerde targets |
| PubChem-database | National Center for Biotechnology Information | N.v.t. | Ophalen van ligandstructuren |
| PVDF-membraan | Millipore/Merck | IPVH00010 | Proteïne-transfermembraan voor western blotting |
| PyMOL moleculaire graphicsysteem | Schrijfödinger, LLC | Versie 2.6.2 | Visualisatie van de docking-pose |
| R-software | R Foundation for Statistical Computing | Versie 4.3.2 | Analyse van doelwitintersectie en verrijking |
| Ratten glomerulaire mesangiale cellijn (HBZY-1) | Procell Life Science & Technology Co., Ltd. | CL-0117 | In vitro validatiemodel voor mesangiale cellen |
| RCSB Protein Data Bank | Research Collaboratory voor Structurele Bio-informatica | PDB ID: 3LN1 | Opvraging van de kristalstructuur van PTGS2/COX2 |
| Recombinant humaan TGF-β1 eiwit | PeproTech, een merk van Thermo Fisher Scientific | 100-21-10UG | recombinant humaan TGF- afgeleid van HEK293β1; profibrotische stimulatie bij 10 ng/mL. |
| SDS-PAGE-elektroforese-systeem | Bio-Rad Laboratories | Mini-PROTEAN Tetra | Proteïnescheiding via SDS-PAGE |
| STRING-database | ELIXIR/STRING-consortium | Versie 12.0 | Constructie van eiwit-eiwitinteractienetwerken |
| TCMSP-database | Systeemfarmacologische database voor Traditionele Chinese Geneeskunde | Niet beschikbaar | Screening van kandidaatverbindingen uit Cordyceps sinensis |
| Database voor therapeutische targets | Innovatieve Drugsonderzoek- en Bio-informatica Groep | Niet beschikbaar | Opvragen van therapeutische targets |
| α-primair SMA-antilichaam | Proteintech Group | 14395-1-AP | Detectie van α-SMA-proteïne-expressie |
| β-Sitosterol (zuiverheid >98%) | MedChemExpress | HY-N0171A | CAS 83-46-5; gedefinieerde verbinding gebruikt voor celbehandeling; 10 mM voorraadoplossing in absol ethanol. |
Referenties
- Kidney Disease: Improving Global Outcomes Glomerular Diseases Work G. KDIGO 2021 Clinical Practice Guideline for the Management of Glomerular Diseases. Kidney Int. 2021;100(4S):S1–S276.
- Roccatello D. et al. From inflammation to renal fibrosis: A one-way road in autoimmunity? Autoimmun Rev. 2024;23(4):103466.
- Reiss AB. et al. Fibrosis in Chronic Kidney Disease: Pathophysiology and Therapeutic Targets. J Clin Med. 2024;13(7).
- Kant S, Kronbichler A, Geetha D. Principles of Immunosuppression in the Management of Kidney Disease: Core Curriculum 2022. Am J Kidney Dis. 2022;80(3):393–405.
- El Karoui K, Fervenza FC, De Vriese AS. Treatment of IgA Nephropathy: A Rapidly Evolving Field. J Am Soc Nephrol. 2024;35(1):103–16.
- Stenvinkel P. et al. Chronic Inflammation in Chronic Kidney Disease Progression: Role of Nrf2. Kidney Int Rep. 2021;6(7):1775–87.
- Tanaka S, Portilla D, Okusa MD. Role of perivascular cells in kidney homeostasis, inflammation, repair and fibrosis. Nat Rev Nephrol. 2023;19(11):721–32.
- Liu W. et al. Mechanism of Cordyceps sinensis and its Extracts in the Treatment of Diabetic Kidney Disease: A Review. Front Pharmacol. 2022;13:881835.
- Yan G. et al. The effects of Ophiocordyceps sinensis combined with ACEI/ARB on diabetic kidney disease: A systematic review and meta-analysis. Phytomedicine. 2023;108:154531.
- Li S, Pang W, Wang Y, Zhang Y. Cordyceps sinensis extract protects against acute kidney injury by inhibiting perforin expression in NK cells via the STING/IRF3 pathway. Aging (Albany NY). 2024;16(7):5887–904.
- Zhang Y, Li K, Zhang C, Liao H, Li R. Research Progress of Cordyceps sinensis and Its Fermented Mycelium Products on Ameliorating Renal Fibrosis by Reducing Epithelial-to-Mesenchymal Transition. J Inflamm Res. 2023;16:2817–30.
- Zhao L. et al. Network pharmacology, a promising approach to reveal the pharmacology mechanism of Chinese medicine formula. J Ethnopharmacol. 2023;309:116306.
- Ru J. et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 2014;6:13.
- Bi Y. et al. beta-Sitosterol Suppresses LPS-Induced Cytokine Production in Human Umbilical Vein Endothelial Cells via MAPKs and NF-kappaB Signaling Pathway. Evid Based Complement Alternat Med. 2023;2023:9241090.
- Sun Y, Gao L, Hou W, Wu J. beta-Sitosterol Alleviates Inflammatory Response via Inhibiting the Activation of ERK/p38 and NF-kappaB Pathways in LPS-Exposed BV2 Cells. Biomed Res Int. 2020;2020:7532306.
- Park YJ. et al. Effects of beta-Sitosterol from Corn Silk on TGF-beta1-Induced Epithelial-Mesenchymal Transition in Lung Alveolar Epithelial Cells. J Agric Food Chem. 2019;67(35):9789–95.
- Li DD. et al. RTEC-intrinsic IL-17-driven inflammatory circuit amplifies antibody-induced glomerulonephritis and is constrained by Regnase-1. JCI Insight. 2021;6(13).
- Martin-Carro B. et al. Role of Klotho and AGE/RAGE-Wnt/beta-Catenin Signalling Pathway on the Development of Cardiac and Renal Fibrosis in Diabetes. Int J Mol Sci. 2023;24(6).
- Naas S, Schiffer M, Schodel J. Hypoxia and renal fibrosis. Am J Physiol Cell Physiol. 2023;325(4):C999–C1016.
- Harris RC, Breyer MD. Physiological regulation of cyclooxygenase-2 in the kidney. Am J Physiol Renal Physiol. 2001;281(1):F1–11.
- Calder PC. Eicosanoids. Essays Biochem. 2020;64(3):423–41.
- Waldner C, Heise G, Schror K, Heering P. COX-2 inhibition and prostaglandin receptors in experimental nephritis. Eur J Clin Invest. 2003;33(11):969–75.
- Pan Y. et al. Myeloid cyclooxygenase-2/prostaglandin E2/E-type prostanoid receptor 4 promotes transcription factor MafB-dependent inflammatory resolution in acute kidney injury. Kidney Int. 2022;101(1):79–91.
- Volzke A, Koch A, Meyer Zu Heringdorf D, Huwiler A, Pfeilschifter J. Sphingosine 1-phosphate (S1P) induces COX-2 expression and PGE2 formation via S1P receptor 2 in renal mesangial cells. Biochim Biophys Acta. 2014;1841(1):11–21.
- Sawano H. et al. 15-Deoxy-Delta12,14-prostaglandin J2 inhibits IL-1beta-induced cyclooxygenase-2 expression in mesangial cells. Kidney Int. 2002;61(6):1957–67.
- Guo B. et al. Peroxisome proliferator-activated receptor-gamma ligands inhibit TGF-beta 1-induced fibronectin expression in glomerular mesangial cells. Diabetes. 2004;53(1):200–8.
- Zou R. et al. PPARgamma agonists inhibit TGF-beta-PKA signaling in glomerulosclerosis. Acta Pharmacol Sin. 2010;31(1):43–50.
- Wei J. et al. PP2 Ameliorates Renal Fibrosis by Regulating the NF-kappaB/COX-2 and PPARgamma/UCP2 Pathway in Diabetic Mice. Oxid Med Cell Longev. 2021;2021:7394344.
- Yang C, Chen EA, Zhang Y. Protein-Ligand Docking in the Machine-Learning Era. Molecules. 2022;27(14).
- Quiroga R, Villarreal MA. Developing Generalizable Scoring Functions for Molecular Docking: Challenges and Perspectives. Curr Med Chem. 2025;32(28):5960–72.
- Li J. et al. TGF-beta/Smad signaling in chronic kidney disease: Exploring post-translational regulatory perspectives (Review). Mol Med Rep. 2024;30(2).