Door gebruik te maken van bulk-, single-cell- en ruimtelijke transcriptomische analyses, samen met survivalmodellering op basis van machine learning en experimentele validatie, wijst deze studie PPARG aan als een kandidaat senescentie-gerelateerd prognostisch gen bij osteosarcoom en associeert de verminderde expressie ervan met een ongunstige overleving in TARGET-OS en vasculaire en micro-omgevingskenmerken.
Onderzoeksartikel
Integratieve bulk-, single-cell- en ruimtelijke transcriptomische analyses wijzen PPARG aan als een kandidaat-prognostisch gen gerelateerd aan senescentie bij osteosarcoom
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Osteosarcoom blijft een uitdaging bij metastatische, recurrente of therapieresistente ziekte. Deze studie had tot doel senescentie-gerelateerde prognostische genen te identificeren en hun ruimtelijke contexten te karakteriseren. Gepaarde differentiële expressieanalyse werd uitgevoerd in GSE99671 met behulp van DESeq2, gevolgd door intersectie met de CellAge senescentie-genenset. Transcriptomische gegevens van de TARGET-OS cohort werden verkregen uit UCSC Xena. Kandidaatgenen werden geëvalueerd met behulp van univariate Cox-regressie, Kaplan-Meier-analyse, tijdsonafhankelijke receiver operating characteristic-analyse, LASSO Cox-regressie, herhaalde LASSO-analyse en random survival forest-modellering, waarbij klinische covariabelen werden opgenomen in gecorrigeerde Cox-modellen. Functionele verrijking, analyse van de immuunmicro-omgeving, single-cell transcriptomica, SP_BS3 ruimtelijke transcriptomica, GSE36001 expressievalidatie, en qRT-PCR en Western blot validatie in osteosarcoom 143B-cellen en osteoblastcellen werden gebruikt om dit te karakteriseren. In GSE99671 waren 2.248 genen differentieel tot expressie gebracht met een gecorrigeerde P < 0,05, en hun intersectie met de 866 CellAge-genen leverde 105 senescentie-gerelateerde differentieel tot expressie gebrachte genen op. In TARGET-OS was een lagere PPARG-expressie geassocieerd met een hoger mortaliteitsrisico (univariante HR = 0,603, 95% BI = 0,454–0,802, P = 0,000494; gecorrigeerde HR = 0,224, 95% BI = 0,085–0,589, P = 0,00241). Het toevoegen van PPARG aan het klinische model verhoogde de C-index van 0,707 naar 0,829. PPARG was downgereguleerd in zowel GSE99671 als GSE36001, en qRT-PCR en Western blotting bevestigden een lagere PPARG mRNA- en eiwitexpressie in osteosarcoom 143B-cellen dan in osteoblastcellen. Single-cell analyse lokaliseerde PPARG in endotheelcellen, pericyten, macrofagen/monocyten en tumor-geassocieerde stromale cellen. Ruimtelijke transcriptomische analyse toonde zwakke maar significante positieve correlaties aan tussen PPARG-expressie en de CellAge senescentie-, endotheel-gerelateerde en pericyt-gerelateerde scores. Deze bevindingen nomineren PPARG als een kandidaat CellAge-afgeleide prognostische biomarker geassocieerd met ongunstige overleving en vasculaire micro-omgevingskenmerken bij osteosarcoom en ondersteunen onderzoek naar de potentiële relevantie voor risicostratificatie en de senescentie-gerelateerde tumormicro-omgeving. GSE36001 leverde uitsluitend externe expressievalidatie; onafhankelijke overlevingsvalidatie werd niet uitgevoerd.
Inleiding
Osteosarcoom is de meest voorkomende primaire maligne bottumor bij kinderen, adolescenten en jongvolwassenen1. Hoewel combinatietherapie met meerdere chemotherapeutica en chirurgie de uitkomsten voor gelokaliseerde ziekte heeft verbeterd2,3, blijven patiënten met metastatisch, recidiverend of therapieresistent osteosarcoom een slechte overleving op de lange termijn behouden3,4. Opkomend bewijs geeft aan dat door oxidatieve stress geïnduceerde epigenetische remodellering metastatische adaptatie en tumorprogressie kan faciliteren, wat de complexe moleculaire plasticiteit onderliggend aan agressieve kankerfenotypes benadrukt5. Robuuste biomarkers die zowel klinisch interpreteerbaar als biologisch informatief zijn, blijven beperkt. Daarom blijft het identificeren van moleculaire kenmerken die de heterogeniteit van osteosarcoom en het prognostisch risico over meerdere datalagen vastleggen, van groot belang.
Cellulaire senescentie is een stabiel programma van celcyclusstop dat wordt geïnduceerd door telomeerdisfunctie, DNA-schade, oxidatieve stress, oncogen-activatie en therapeutische druk6. Senescentie kan aberrante proliferatie beperken; senescente cellen kunnen echter ook de tumormicro-omgeving hervormen via programma's voor ontsteking, chemokines, groeifactoren en remodellering van de extracellulaire matrix7,8. Bij osteosarcoom kunnen senescentie-gerelateerde genen zowel tumorcel-intrinsieke stressstaten als niet-maligne micro-omgevingscompartimenten weerspiegelen, maar hun prognostische relevantie en ruimtelijke organisatie zijn nog niet systematisch geëvalueerd.
PPARG codeert voor peroxisome proliferator-activated receptor gamma, een ligand-geactiveerde nucleaire receptor die betrokken is bij het lipidenmetabolisme, ontstekingsregulatie, cellulaire differentiatie en immuunmodulatie9. De rol van PPARG bij kanker is contextafhankelijk10. In sommige situaties wordt PPARG geassocieerd met differentiatie en anti-inflammatoire toestanden, terwijl het in andere gevallen adaptieve tumor- of stromale programma's kan ondersteunen. De expressiepatronen, prognostische waarde en cellulaire en ruimtelijke lokalisatie in osteosarcoom zijn echter nog onvolledig gekarakteriseerd.
In de huidige studie werden differentieel tot expressie gebrachte genen in GSE99671 geïdentificeerd en gekruist met de CellAge-set van senescentie-genen, wat resulteerde in 105 differentieel tot expressie gebrachte genen die gerelateerd zijn aan senescentie. Vervolgens werden TARGET-OS overlevingsgegevens, meerdere machine-learning- en overlevingsmodelleringsbenaderingen en klinische aanpassingen gebruikt om PPARG aan te wijzen als het kerngen. PPARG werd verder gekarakteriseerd middels bulk-functionele analyses en analyses van de immuunmicro-omgeving, single-cell transcriptomics, ruimtelijke transcriptomics, externe expressievalidatie uit GSE36001, en qRT-PCR- en Western blot-validatie in de osteosarcoom-cellijn 143B en menselijke osteoblasten.
Protocol
Voor deze studie werden openbare datasets en cellijnen gebruikt voor analyse en validatie en waren er geen menselijke deelnemers of klinische weefselmonsters bij betrokken; daarom was geen ethische goedkeuring vereist.
Differentiële expressieanalyse in de intersectie van GSE99671 en CellAge
Ruwe countdata en informatie over de monstergroepering voor GSE99671 werden verkregen uit GEO11,12. Achttien paren van osteosarcoom- en matchende normale monsters werden geanalyseerd. Gepaarde differentieel expressieanalyse werd uitgevoerd met DESeq2 met de designformule ~ pair_id + condition, waarbij pair_id corrigeerde voor effecten van gepaarde individuen en condition tumorweefsel vergeleek met normaal weefsel13. Genen met read counts van ten minste 10 in ten minste drie monsters werden behouden. Differentiële expressie werd gedefinieerd als een gecorrigeerde P < 0,05, en voor visualisatie werd een striktere drempelwaarde van gecorrigeerde P < 0,05 en |log2FC| ≥ 1 toegepast. Differentiële expressiegenen werden geïntersecteerd met de 866 CellAge-senescentiegenen nadat de gensymbolen waren omgezet naar hoofdletters14. De differentieel expressieanalyse werd uitgevoerd in R (versie 4.3.2) met behulp van DESeq2 (versie 1.40.2), en gecorrigeerde P-waarden werden berekend met de Benjamini-Hochberg-methode.
TARGET-OS cohort en prognostische modellering
Transcriptomische en klinische data van TARGET-OS werden verkregen via UCSC Xena15. De expressiewaarden voor de 105 differentieel tot expressie gebrachte genen die gerelateerd zijn aan senescentie werden geëxtraheerd. Er werden vijfentachtig patiënten geïncludeerd met volledige gegevens over overlevingstijd, overlevingsstatus en expressie van kandidaatgenen, waarbij 27 sterfgevalen werden vastgesteld. Gestandaardiseerde genexpressiewaarden werden geanalyseerd met behulp van univariate Cox-regressie16, Kaplan-Meier overlevingsanalyse en tijdsonafhankelijke receiver operating characteristic (ROC)-analyse17. LASSO Cox-regressie18, herhaalde LASSO-stabiliteitsanalyse en random survival forest-modellering werden gebruikt om de selectiestabiliteit en het belang van variabelen te beoordelen19. De geïntegreerde hub-score en de klinisch-geïntegreerde rangschikking werden berekend met behulp van de expliciete binaire criteria die hieronder worden beschreven. Overlevingsanalyses werden uitgevoerd in R met de packages survival (versie 3.5-7), timeROC (versie 0.4), glmnet (versie 4.1-8) en randomForestSRC (versie 3.2.2). Voor de univariate Cox-screening van de 105 kandidaatgenen werd de Benjamini-Hochberg false discovery rate (FDR)-correctie toegepast, waarbij genen met een FDR < 0.05 als statistisch significant werden beschouwd.
Preprocessing van het model, PPARG-groepering en tijdsafhankelijke ROC-analyse
Van de 85 patiënten met 27 sterfgevallen werden genen met nulvariantie uitgesloten, ontbrekende expressiewaarden van kandidaatgenen werden via mediaan-imputatie aangevuld en elk kandidaatgen werd z-score gestandaardiseerd. Voor de Kaplan-Meier-analyse werd de expressie gedichotomiseerd op basis van de mediaan van de cohort: waarden strikt boven de mediaan werden toegewezen aan de groep met hoge expressie en waarden op of onder de mediaan aan de groep met lage expressie (PPARG: n = 42 hoog en n = 43 laag). Log-rank-toetsen waren tweezijdig. Voor de tijdsafhankelijke ROC-analyses werd timeROC gebruikt met event cause = 1, marginal inverse-probability-of-censoring weighting, evaluatietijden van 365, 1.095 en 1.825 dagen, en iid = FALSE. Om ervoor te zorgen dat hogere markerwaarden consistent wijzen op een hoger risico, werden gestandaardiseerde expressiewaarden gebruikt voor genen met positieve Cox-coëfficiënten en vermenigvuldigd met -1 voor beschermende genen met negatieve coëfficiënten.
LASSO en herhaalde LASSO
Cox LASSO werd gefit met glmnet met family = "cox", alpha = 1, voorafgaande z-score standaardisatie (daarom standardize = FALSE), vijfvoudige kruisvalidatie, type.measure = "deviance" en random seed 123. Voor de primaire coëfficiëntoplossing werd lambda.min gebruikt. Bij de stabiliteitsanalyse werd dezelfde vijfvoudige kruisvalidatie 300 keer herhaald; herhaling b gebruikte seed 1000 + b (b = 1,...,300). Voor elk gen was de selectiefrequentie de proportie herhalingen met een niet-nul coëfficiënt bij lambda.min; een niet-nul selectie bij lambda.1se werd eveneens geregistreerd.
Random survival forest
Een survival forest werd toegepast op alle 105 gestandaardiseerde kandidaatgenen met randomForestSRC (versie 3.2.2), gebruikmakend van seed 123, ntree = 1.000, importance = TRUE en na.action = "na.impute". De standaardinstellingen van het pakket werden behouden voor survivaldata: log-rank splitting, mtry = 11 (het plafond van de vierkantswortel van 105 predictoren), minimale terminale knooppuntgrootte = 15, nsplit = 10 willekeurige splitpunten, steekproeftrekking zonder teruglegging met een bemonsteringsfractie van 0,632 en anti-split variabele belangrijkheid.
Geïntegreerde hubscore
Elk van de 105 differentieel tot expressie gebrachte kandidaatgenen gerelateerd aan CellAge kreeg één punt voor elk van zes binaire criteria: (1) lidmaatschap van de intersectie tussen differentiële expressie en CellAge (alle kandidaten kregen dit punt omdat een aangepaste P < 0,05 vereist was vóór de scoring); (2) nominale univariate Cox P < 0,05; (3) Kaplan-Meier log-rank P < 0,05; (4) gemiddelde tijdsonafhankelijke AUC over 3 en 5 jaar ≥ 0,65; (5) lambda.min repeated-LASSO selectiefrequentie op of boven het 70ste percentiel over de kandidaten en > 0; en (6) random-survival-forest belang op of boven het 70ste percentiel over de kandidaten en > 0. Alle criteria hadden een gelijkwaardig gewicht, wat resulteerde in een hubscore van 0 tot 6; genen met een score van ≥ 4 gingen over naar klinische aanpassing (18 genen). Univariate Cox FDR-waarden werden ook gerapporteerd, waarbij FDR < 0,05 werd gebruikt om significantie bij meervoudig testen aan te duiden, maar de vooraf gespecificeerde scoringindicator maakte gebruik van de nominale P < 0,05.
Klinisch-geïntegreerde rangschikking
Na het samenvoegen van expressie- en klinische gegevens omvatten de gecorrigeerde analyses 40 patiënten met volledige covariantiegegevens en 13 sterfgevallen. De uiteindelijke score bestond uit de initiële hub-score plus één punt voor elk van de zeven criteria: gecorrigeerde Cox P < 0,05, gecorrigeerde Cox P < 0,10, sensitiviteits-Cox P < 0,05 na het verwijderen van definitieve chirurgie, sensitiviteits-Cox P < 0,10, gemiddelde 3- en 5-jarige AUC ≥ 0,65, likelihood-ratio-test P < 0,10 voor het model met klinische gegevens plus genen versus het model met alleen klinische gegevens, en delta AIC < 0. Omdat de drempelwaarden van 0,05 en 0,10 genest waren, leverde een P < 0,05 twee punten op, waardoor meer gewicht werd toegekend aan duidelijk significante gecorrigeerde en sensitiviteits-Cox bewijzen. Het totale bereik was 0 tot 13; gelijke scores werden opgelost door de kleinste gecorrigeerde Cox P-waarde, gevolgd door de grootste gemiddelde 3-/5-jarige AUC. PPARG kreeg alle zes initiële punten en alle zeven klinische integratiepunten (13/13) en werd daarmee als eerste gerangschikt. De verbetering van de C-index werd beschrijvend gerapporteerd en kreeg geen score toegewezen.
Klinische aanpassing
Kandidaat-hubgenen werden geïntegreerd met TARGET-OS klinische variabelen, waaronder geslacht, leeftijd, ziektestatus bij diagnose, primaire tumorgesteldheid, specifieke tumorregio en definitieve chirurgie. Veertig patiënten met volledige expressie- en klinische dossiers, waaronder 13 overlijdens, werden opgenomen in de klinisch-aangepaste analyses. Cox-modellen die uitsluitend klinische variabelen bevatten, werden vergeleken met modellen die klinische variabelen plus genexpressie bevatten. C-index, Akaike-informatiecriterium (AIC) en likelihood-ratio-test P-waarden werden gebruikt om modelverbetering te evalueren. Een sensitiviteitsanalyse werd uitgevoerd na het verwijderen van de chirurgische variabele.
Functionele verrijking en analyse van de immuunmicro-omgeving
TARGET-OS-monsters werden gestratificeerd op basis van de PPARG-expressie. Differentiële expressie tussen de PPARG-high- en PPARG-low-groepen werd gebruikt om gerangschikte genenlijsten te genereren voor gene set enrichment analysis (GSEA)20. De weergegeven pathways waren Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway en Reactome: Fatty Acids. Er werd een bulk CellAge-senescentiescore berekend, en Spearman-correlatieanalyse werd gebruikt om associaties tussen PPARG en senescentiegenen of handtekeningen van de immuunmicro-omgeving te beoordelen21. Verschillen in micro-omgevingsscores tussen de PPARG-high- en PPARG-low-groepen werden geëvalueerd met behulp van non-parametrische tests met correctie voor meervoudig testen.
Transcriptomische analyse van individuele cellen
Een gepubliceerde transcriptomische dataset van individuele menselijke osteosarcoomcellen werd geanalyseerd met behulp van een voorbewerkt object waarvoor kwaliteitscontrole, dimensiereductie, clustering en handmatige annotatie al waren voltooid22,23,24. In totaal werden 68.336 cellen en 32.297 genen opgenomen. Voor de interpretatie in de hoofdtekst werden de annotaties vereenvoudigd tot 13 belangrijke celtypen: B-cellen, CAF's, cycluserende cellen, endotheelcellen, erytroïde cellen, macrofagen/monocyten, maligne osteosarcoomcellen, myogene cellen, neutrofielen, osteoclast-achtige cellen, pericyten, T/NK-cellen en tumor-geassocieerde stromale cellen. Dimensiereductie, feature-expressie, dot-plots en violin-plots werden gebruikt om de lokalisatie van PPARG te visualiseren. PPARG-positieve cellen werden gedefinieerd als cellen met een expressie groter dan nul. Verschillen tussen celtypen werden beoordeeld met Kruskal-Wallis- en Wilcoxon-rangsomtoetsen met Benjamini-Hochberg-correctie. De single-cell-analyses werden uitgevoerd in R met behulp van Seurat (versie 5.0.1).
Ruimtelijke transcriptomische analyse
Het SP_BS3 ruimtelijke transcriptomische monster werd gebruikt om een ruimtelijk expressie-object te construeren25,26. De drempelwaarden voor kwaliteitscontrole waren nFeature_Spatial ≥ 200 en percent.mt ≤ 30, waardoor 4.572 spots overbleven voor analyse. De gegevens werden genormaliseerd, er werden 3.000 zeer variabele genen geselecteerd, en er werden datashaling, principale componentanalyse, constructie van een buurtgrafiek, ruimtelijke spot-clustering en dimensionaliteitsreductie uitgevoerd. Een ruimtelijke CellAge senescentiescore werd berekend nadat PPARG uit de genenset was verwijderd om circulaire correlatie te voorkomen. Signaturen voor endotheelcellen, pericyten, macrofagen/monocyten, tumor-geassocieerd stroma, maligne osteosarcoma en osteoclast-achtige cellen werden geconstrueerd en gescoord. Spearman-correlatieanalyse werd gebruikt om associaties tussen PPARG-expressie en ruimtelijke scores te beoordelen. Labeltransfer werd uitgevoerd met de single-cell dataset als referentie en de ruimtelijke dataset als query om voorspelde celtype-scores voor elke spot af te leiden23,24. Ruimtelijke transcriptomische analyses werden uitgevoerd in R met behulp van Seurat (versie 5.0.1), en Benjamini-Hochberg FDR-correctie werd toegepast op alle ruimtelijke correlatie P-waarden.
Externe expressievalidatie in GSE36001
De GEO-dataset GSE36001 werd uitsluitend gebruikt als onafhankelijke cohort voor expressievalidatie; omdat overlevingsuitkomsten niet beschikbaar waren, werd deze niet gebruikt voor prognostische validatie11,27. De dataset bevatte 19 osteosarcoommonsters en zes normale controlemonsters. De GPL6102-platformannotatie werd gebruikt om probe-identificatoren om te zetten in gensymbolen. Wanneer meerdere probes aan hetzelfde gen waren gekoppeld, werd de probe met de hoogste gemiddelde expressie behouden. Differentiële expressie tussen tumor- en normaalgroepen werd beoordeeld met behulp van limma28. Analyses werden uitgevoerd in R met limma (versie 3.56.2), en gecorrigeerde P-waarden werden berekend met de Benjamini-Hochberg-methode.
Validatie via qRT-PCR en Western blot
Experimentele validatie werd uitgevoerd met de menselijke osteosarcoom-cellijn 143B en menselijke osteoblastcellen. Osteosarcoomcellen werden gekweekt in Dulbecco's modified Eagle's medium, aangevuld met 10% foetaal runderserum en 1% penicilline-streptomycine bij 37 °C in een bevochtigde atmosfeer met 5% CO₂, en gepassaged met 0,25% trypsine-EDTA bij een confluentie van 80%–90%. Menselijke osteoblastcellen werden onderhouden volgens de aanbevolen kweekcondities. Voor alle cellijnen is bevestigd dat er geen mycoplasma-contaminatie aanwezig was. Voor qRT-PCR werd totaal RNA geëxtraheerd met een RNA-extractiereagens op basis van fenol-guanidinium, waarna de RNA-concentratie en -zuiverheid spectrofotometrisch werden bepaald. Eén microgram totaal RNA werd reverse-getranscribeerd met een reverse-transcriptiereagens volgens het aanbevolen protocol. qRT-PCR werd uitgevoerd met chemie op basis van fluorescerende DNA-bindende kleurstoffen onder de volgende cycluscondities: initiële denaturatie bij 95 °C gedurende 30 s, gevolgd door 40 cycli bij 95 °C gedurende 5 s en 60 °C gedurende 30 s, met smeltcurve-analyse om de amplificatiespecificiteit te bevestigen. Elke reactie werd in technisch triplicaat uitgevoerd en er werden drie onafhankelijke biologische experimenten uitgevoerd. GAPDH werd gebruikt als interne controle en de relatieve PPARG-expressie werd berekend met de 2-ΔΔCt methode29. De PPARG forward-primer was 5'-CGAAGACATTCCATTCACAAGAACAG-3' en de reverse-primer was 5'-AGATGCAGGCTCCACTTTGATTG-3'.
Western blotting werd uitgevoerd om de expressie van het PPARG-eiwit te onderzoeken. Cellen werden gelyseerd in radioimmunoprecipitatie-assaybuffer aangevuld met protease-remmers, en eiwitconcentraties werden bepaald met een bicinchoninezuur-assay. Gelijke hoeveelheden eiwit (30 µg per lane) werden gescheiden via 10% natriumdodecylsulfaat-polyacrylamidegelelektroforese en overgebracht op polyvinylideenfluoride-membranen. Na blokkeren met 5% magere melk gedurende 1 u bij kamertemperatuur, werden de membranen overnacht bij 4 °C geïncubeerd met primaire antilichamen tegen PPARG (1:1.000) en GAPDH (1:5.000), gevolgd door incubatie met een met mierikswortelperoxidase geconjugeerd secundair antilichaam (1:5.000) gedurende 1 u bij kamertemperatuur. Eiwitbanden werden gevisualiseerd met chemiluminescentiedetectie, waarbij drie onafhankelijke experimenten zijn uitgevoerd. Bandintensiteiten werden gekwantificeerd met behulp van beeldanalyse-software30. Verschillen tussen groepen werden geanalyseerd met tweezijdige ongepaarde Student's t-toetsen. Gegevens werden gepresenteerd als het gemiddelde ± standaarddeviatie (SD) van drie onafhankelijke experimenten, waarbij P < 0,05 als statistisch significant werd beschouwd. Statistische analyses van de experimentele gegevens werden uitgevoerd met statistische analyse-software (versie 9.0).
Statistische analyse
Tenzij anders vermeld, werden alle bioinformatische analyses uitgevoerd in R (versie 4.3.2). Tweezijdige P waarden < 0,05 werden beschouwd als statistisch significant. Correlaties werden beoordeeld met behulp van de rangcorrelatiecoëfficiënt van Spearman (ρ). Correctie voor meervoudig testen werd, waar van toepassing, uitgevoerd met de Benjamini-Hochberg FDR-methode. Experimentele gegevens werden gepresenteerd als het gemiddelde ± SD en werden vergeleken met behulp van tweezijdige ongepaarde Student's t-toetsen. Experimentele statistische analyses werden uitgevoerd met statistische analyse-software (versie 9.0).
Resultaten
GSE99671 identificeerde 105 differentieel tot expressie gebrachte genen gerelateerd aan CellAge-senescentie
GSE99671 omvatte 36 monsters van 18 gepaarde weefsels. Na filtering van lage counts bleven 16.683 genen over. Bij een gecorrigeerde P < 0,05 waren 2.248 genen differentieel tot expressie gebracht. Onder de striktere drempelwaarde van een gecorrigeerde P < 0,05 en |log2FC| ≥ 1 waren 594 genen significant, waaronder 102 upgereguleerde en 492 downgereguleerde genen in tumoren (Figuur 1A,B). De intersectie van de 2.248 differentieel tot expressie gebrachte genen met 866 CellAge-genen leverde 105 differentieel tot expressie gebrachte genen op die gerelateerd zijn aan senescentie (Figuur 1C). PPARG was downgereguleerd in GSE99671, met log2FC = -0,644, P = 0,00451 en een gecorrigeerde P-waarde = 0,0309. In 13 van de 18 paren was de expressie van PPARG hoger in normaal weefsel dan in tumorweefsel, met een gepaarde Wilcoxon P = 0,0294 (Figuur 1D).
Multi-model prognostische screening wees PPARG aan als het belangrijkste kandidaatgen
In TARGET-OS werden 85 patiënten met 27 overlijdensgevallen opgenomen. Geïntegreerde screening van de 105 differentieel tot expressie gebrachte senescentie-gerelateerde genen met behulp van univariate Cox-regressie, Kaplan-Meier-analyse, overlevings-ROC-analyse, LASSO, herhaalde LASSO en random survival forest-modellering leverde 18 kandidaat hub-genen op vóór klinische correctie (Figuur 2A). PPARG was geassocieerd met de algehele overleving in de univariate Cox-analyse (HR = 0,603, 95% BI = 0,454–0,802, P = 0,000494, FDR = 0,0447), wat aangeeft dat een hogere PPARG-expressie geassocieerd was met een lager sterfterisico. Kaplan-Meier-analyse waarbij de groepen met hoge en lage expressie werden vergeleken, leverde P = 0,00784 op (Figuur 2B). Tijdsonafhankelijke AUC's na 1, 3 en 5 jaar waren respectievelijk 0,603, 0,760 en 0,776 (Figuur 2C). PPARG vertoonde een herhaalde LASSO-selectiefrequentie van 0,920 en een random survival forest-belangrijkheid van 0,0398 (Figuur 2D–F). De initiële hub-score van PPARG was 6/6 omdat het voldeed aan alle zes de vooraf vastgestelde screeningscriteria.
Klinische correctie ondersteunde de prognostische associatie van PPARG
Nadat klinische covariabelen waren opgenomen, bleef PPARG significant geassocieerd met de algehele overleving (gecorrigeerde HR = 0,224, 95% BI = 0,085–0,589, P = 0,00241; Figuur 2G). Het model met uitsluitend klinische variabelen had een C-index van 0,707 en een AIC van 89,921 (Aanvullende Tabel 1). De toevoeging van PPARG verhoogde de C-index naar 0,829, verlaagde de AIC naar 78,466 en verbeterde de modelpassing significant volgens de likelihood-ratio-test (P = 0,000244; Aanvullende Tabel 2, Figuur 2H,I). Sensitiviteitsanalyse na verwijdering van definitieve chirurgie behield de beschermende associatie van PPARG (HR = 0,249, P = 0,00185; Aanvullende Tabel 3, Figuur 2J). PPARG behaalde de hoogste klinisch-geïntegreerde score van 13 (initiële hub-score 6 plus zeven klinisch-integratiepunten) en vertoonde uiteindelijke 3- en 5-jaars AUC's van 0,770 en 0,813 (Figuur 2K).
PPARG-geassocieerde functionele en immuun-micro-omgevingskenmerken
GSEA-analyse waarbij groepen met een hoge en lage PPARG-expressie werden vergeleken, toonde Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway en Reactome: Fatty Acids (Figuur 3A). In bulk TARGET-OS data was PPARG niet significant gecorreleerd met de algemene CellAge-senescentiescore (Spearman ρ = 0.022, P = 0.837; Figuur 3B), maar was het wel gecorreleerd met verschillende individuele CellAge-genen (Figuur 3C). Analyse van de immuun-micro-omgeving toonde positieve correlaties tussen PPARG en macrofagen (ρ = 0.485, FDR = 2.7 × 10⁻⁵), CD8 T-cellen (ρ = 0.410, FDR = 5.88 × 10⁻⁴), de osteoclast-achtige signatuur (ρ = 0.383, FDR = 0.00120), neutrofielen (ρ = 0.376, FDR = 0.00120) en dendritische cellen (ρ = 0.370, FDR = 0.00123). Tumoren met een hoge PPARG-expressie vertoonden na FDR-correctie hogere signaturen voor osteoclast-achtige cellen, macrofagen, CD8 T-cellen, dendritische cellen, monocyten, neutrofielen, NK-cellen en endotheelcellen (Aanvullende Tabel 4, Figuur 3D,E).
Single-cell transcriptomics lokaliseerde PPARG in vasculaire en micro-omgevingscompartimenten
De single-cell dataset bevatte 68.336 cellen en 32.297 genen. De expressie van PPARG verschilde significant tussen de celtypen (Figuur 4A). De hoogste gemiddelde expressie werd waargenomen in endotheelcellen (gemiddelde expressie = 0.540; positieve ratio = 44,33%), pericyten (gemiddelde expressie = 0.439; positieve ratio = 41,61%), macrofagen/monocyten (gemiddelde expressie = 0.363; positieve ratio = 31,62%) en tumor-geassocieerde stromale cellen (gemiddelde expressie = 0.361; positieve ratio = 44,10%; Figuur 4B–E). Een subset van maligne osteosarcoomcellen vertoonde expressie van PPARG (gemiddelde expressie = 0.163; positieve ratio = 16,70%), maar de expressie in maligne osteosarcoomcellen was niet significant hoger dan die in andere cellen (FDR = 0.151). Deze bevindingen suggereerden dat de PPARG-expressie in osteosarcoom voornamelijk vasculaire, myeloïde en stromale micro-omgevingsstaten weerspiegelde, in plaats van beperkt te zijn tot maligne cellen (Figuur 4F).
Ruimtelijke transcriptomica koppelde PPARG aan senescentie-gerelateerde ruimtelijke toestanden en vasculaire niches
Na kwaliteitscontrole werden 4.572 SP_BS3 ruimtelijke spots behouden en gegroepeerd in zeven ruimtelijke clusters (Figuur 5A). Figuur 5B toont de ruimtelijke distributie van nFeature_Spatial (gedetecteerde genen per spot). Afzonderlijk werden van de 866 CellAge-genen er 845 gematcht in de ruimtelijke expressiematrix (97,58%). PPARG vertoonde focale ruimtelijke expressie (Figuur 5C). De CellAge ruimtelijke senescentiescore, berekend nadat PPARG was verwijderd, vertoonde een zwakke maar statistisch significante positieve correlatie met de PPARG-expressie (ρ = 0,0692, P = 3,0 × 10⁻⁶, FDR = 1,9 × 10⁻⁵; Figuur 5D). Scoring van de ruimtelijke niche toonde positieve correlaties tussen PPARG en de endotheliale score (ρ = 0,0433, FDR = 0,00592) en de pericytscore (ρ = 0,0367, FDR = 0,0181), terwijl PPARG negatief correleerde met de score voor maligne osteosarcoom (ρ = -0,0592, FDR = 0,000219) en de tumorstromale score (ρ = -0,0531, FDR = 0,000774; Aanvullende Tabel 5, Figuur 5E). Label-transferanalyse toonde op soortgelijke wijze positieve correlaties met de endotheliale predictiescore (ρ = 0,0507, FDR = 0,00120) en de pericytpredictiescore (ρ = 0,0394, FDR = 0,0123), samen met een negatieve correlatie met de predictiescore voor maligne osteosarcoomcellen (ρ = -0,0699, FDR = 1,1 × 10⁻⁵; Figuur 5F–H).
Externe expressie en experimentele validatie bevestigden de downregulatie van PPARG
GSE36001 bevatte 19 osteosarcoommonsters en zes normale controles. PPARG was significant downgereguleerd in osteosarcoom (logFC = -1.429, P = 0.00730, aangepaste P-waarde = 0.0435; Figuur 6A). Bij celgebaseerde validatie was de mRNA-expressie van PPARG in osteosarcoom 143B-cellen significant lager dan in menselijke osteoblastcellen via qRT-PCR (P < 0.001; Figuur 6B). De eiwitexpressie van PPARG was eveneens significant verlaagd in 143B-cellen via Western blotting (P < 0.01; Figuur 6C,D). Deze bevindingen op mRNA- en eiwitniveau in de externe cohort ondersteunden consistent een verminderde PPARG-expressie bij osteosarcoom. GSE36001 bevatte geen overlevingsuitkomsten en bood daarom enkel externe expressievalidatie en geen onafhankelijke prognostische validatie.
DATAbeschikbaarheid:
Alle datasets die in deze studie zijn gebruikt, zijn openbaar beschikbaar. GSE99671 en GSE36001 zijn verkregen uit de Gene Expression Omnibus-database (https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE99671; https://www.ncbi.nlm.nih.gov/geo/query/acc.cgi/acc=GSE36001). Transcriptomische en klinische data van TARGET-OS zijn gedownload van UCSC Xena (https://xena.ucsc.edu/). Senescentie-gerelateerde genen zijn verkregen uit CellAge: The Database of Cell Senescence Genes, onderdeel van de Human Ageing Genomic Resources (https://genomics.senescence.info/cells/). De single-cell en ruimtelijke transcriptomische datasets van het menselijke osteosarcoom zijn verkregen uit de gepubliceerde atlas en de bijbehorende GitHub-repository (https://github.com/zhengxj1/A-Single-Cell-and-Spatially-Resolved-Atlas-of-Human-Osteosarcomas). Gensets voor verrijkingsanalyse zijn verkregen uit MSigDB (https://www.gsea-msigdb.org/gsea/msigdb/). De in deze studie gegenereerde bewerkte gegevens en de analysescripts die zijn gebruikt om de gerapporteerde resultaten te reproduceren, zijn samengesteld en ingediend als Aanvullend Bestand 1.
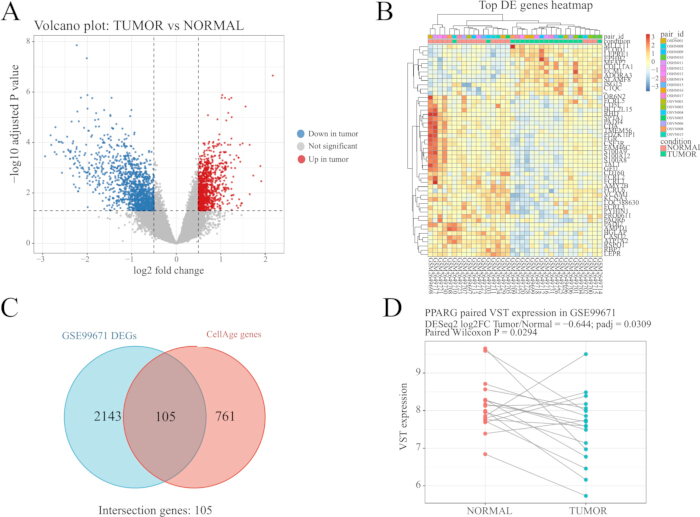
Figuur 1: Identificatie van differentieel tot expressie gebrachte genen en CellAge-afgeleide senescentie-gerelateerde kandidaatgenen in osteosarcoom. (A) Volcano plot die de differentieel tot expressie gebrachte genen tussen osteosarcoomweefsels en gepaarde niet-tumorale controleweefsels in de GSE99671-dataset weergeeft. Significant upgereguleerde en downgereguleerde genen zijn gemarkeerd volgens de vooraf gedefinieerde afkapcriteria. (B) Heatmap die de expressiepatronen van representatieve differentieel tot expressie gebrachte genen in osteosarcoom- en gepaarde controlemonsters in GSE99671 laat zien. (C) Venn-diagram dat de overlap tussen de differentieel tot expressie gebrachte genen van GSE99671 en de CellAge senescentie-gerelateerde genen weergeeft. (D) Gepaarde expressievergelijking van PPARG tussen osteosarcoomweefsels en overeenkomstige niet-tumorale controleweefsels in GSE99671. Klik hier om een grotere versie van deze figuur te bekijken.
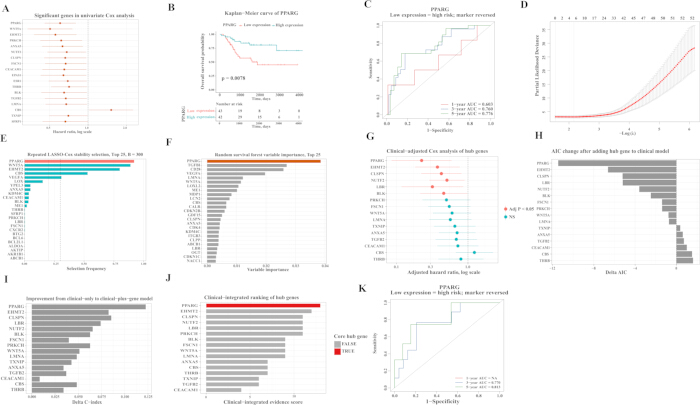
Figuur 2: Machine-learning en klinisch gecorrigeerde overlevingsanalyses identificeren PPARG als een kern-prognostisch hubgen gerelateerd aan senescentie bij osteosarcoom. (A) Forest plot met univariate Cox-regressieresultaten voor kandidaat-senescentie-gerelateerde genen in de TARGET-OS cohort. (B) Kaplan-Meier-overlevingscurve waarin de algehele overleving tussen patiënten met een hoge PPARG-expressie en een lage PPARG-expressie wordt vergeleken. (C) Tijdsonafhankelijke ROC-curves die de voorspellende waarde van PPARG voor de algehele overleving evalueren. (D) Cross-validatiecurve van LASSO Cox-regressie voor de selectie van prognostische kandidaatgenen. (E) Herhaalde LASSO-stabiliteitsanalyse die de selectiefrequenties van lambda.min laat zien over 300 vijf-voudige herhalingen. (F) Random survival forest-analyse met variable importance-scores van 1.000 bomen. (G) Forest plot met resultaten van de klinisch gecorrigeerde Cox-regressie voor kandidaathubgenen. (H) AIC-veranderingen na de toevoeging van individuele hubgenen aan het klinische model. (I) Verbetering van de C-index na de toevoeging van individuele hubgenen aan het klinische model. (J) Eindrangschikking van de kandidaathubgenen op basis van de klinisch-geïntegreerde score (bereik 0–13). (K) Tijdsonafhankelijke ROC-curves van PPARG in de subset van 40 patiënten voor klinische analyse, met weergave van de AUC's na 3 en 5 jaar; de 1-jaars AUC kon niet worden geschat. Klik hier om een grotere versie van deze figuur te bekijken.
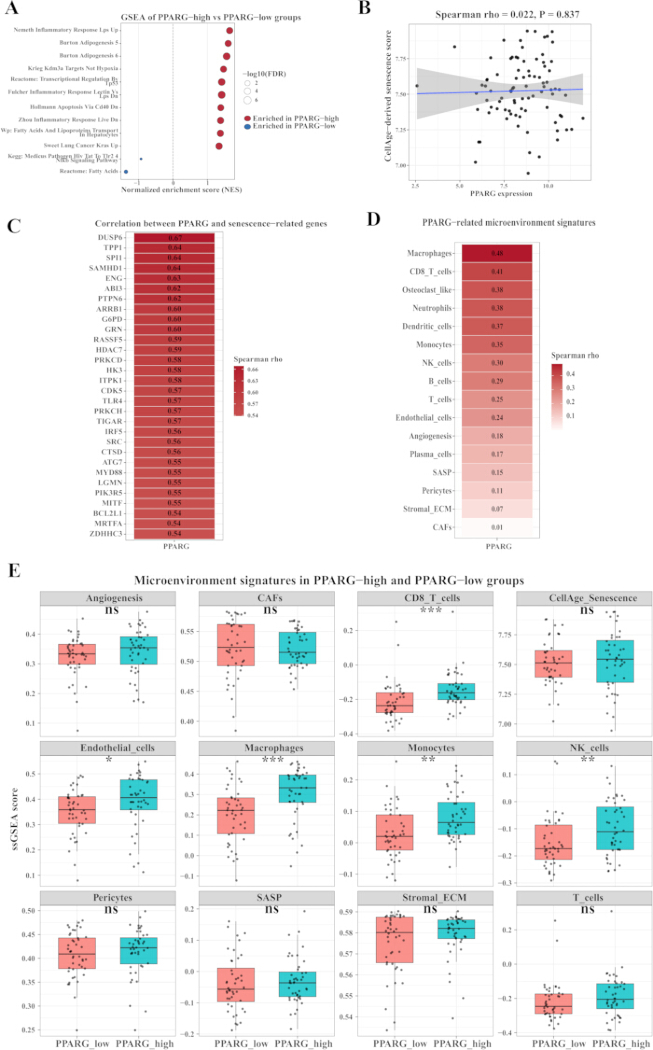
Figuur 3: PPARG-geassocieerde functionele verrijking en analyse van de immuunmicro-omgeving. (A) GSEA bubble plot waarin PPARG-hoge en PPARG-lage groepen worden vergeleken en waarin Nemeth Inflammatory Response LPS Up, Burton Adipogenesis 5, Burton Adipogenesis 6, Krieg KDM3A Targets Not Hypoxia, Reactome: Transcriptional Regulation By TP53, Fulcher Inflammatory Response Lectin Vs LPS Dn, Hollmann Apoptosis Via CD40 Dn, Zhou Inflammatory Response Live Dn, WP: Fatty Acids And Lipoproteins Transport In Hepatocytes, Sweet Lung Cancer KRAS Up, KEGG Medicus Pathogen HIV Tat To TLR2/4 NF-kB Signaling Pathway en Reactome: Fatty Acids worden weergegeven. (B) Correlatie tussen PPARG en de totale CellAge-senescentiescore in bulk TARGET-OS data. (C) Correlaties tussen PPARG en individuele CellAge-genen. (D) Correlaties tussen PPARG en signatures van de immuunmicro-omgeving. (E) Verschillen in micro-omgevingsscores tussen PPARG-hoge en PPARG-lage groepen. Correlaties zijn beoordeeld met behulp van de rangcorrelatiecoëfficiënt van Spearman (ρ), en gecorrigeerde P-waarden zijn berekend met de Benjamini-Hochberg-methode. Afkortingen: GSEA = gene set enrichment analysis; NF-κB = nuclear factor kappa-B; JAK-STAT = Janus kinase-signal transducer and activator of transcription; IL-12 = interleukine-12; FDR = false discovery rate. Klik hier om een grotere versie van deze figuur te bekijken.
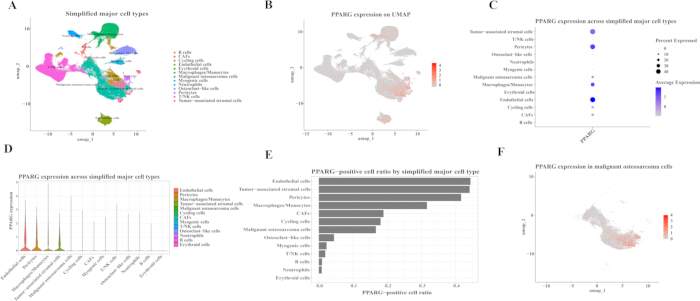
Figuur 4: Lokalisatie van PPARG over cellulaire compartimenten in single-cell transcriptomische data van osteosarcoom. (A) UMAP-visualisatie van de belangrijkste celtypen in de human osteosarcoma single-cell transcriptomische dataset na vereenvoudigde handmatige annotatie. (B) FeaturePlot die de globale distributie van PPARG-expressie over single cells laat zien. (C) DotPlot die de PPARG-expressie over de belangrijkste celtypen laat zien. (D) Violin plot die de PPARG-expressieniveaus in verschillende celtypen laat zien. (E) Staafdiagram dat de proportie PPARG-positieve cellen in elk belangrijk celtype laat zien. (F) UMAP-visualisatie die de PPARG-expressie in maligne osteosarcoomcellen laat zien. Afkorting: UMAP = uniform manifold approximation and projection. Klik hier om een grotere versie van deze figuur te bekijken.
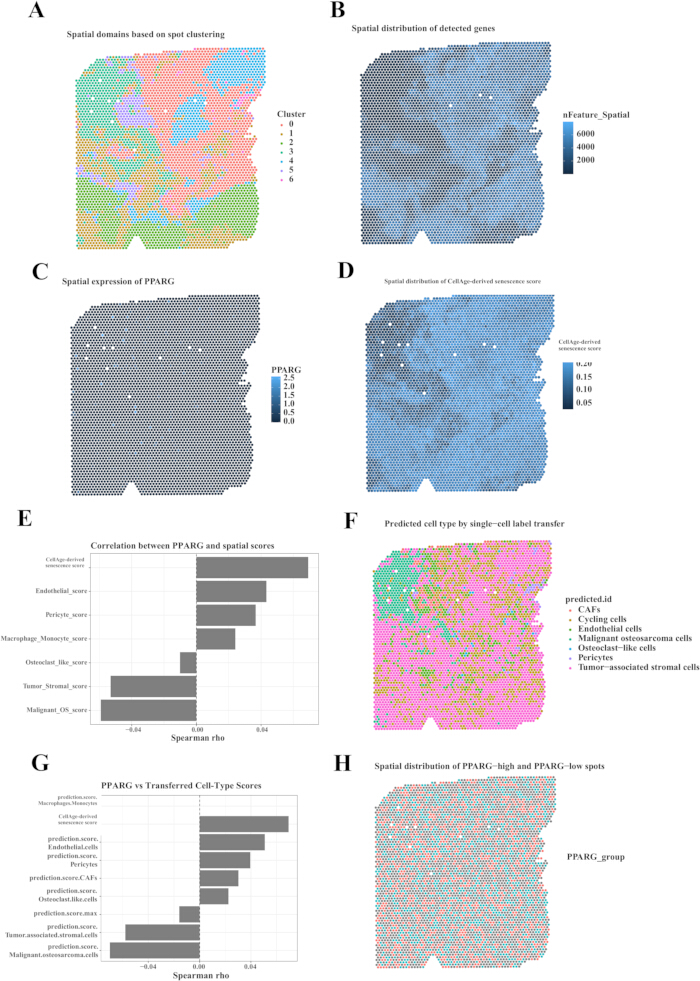
Figuur 5: Spatiële transcriptomische lokalisatie van PPARG en senescentie-gerelateerde spatiële kenmerken in osteosarcoom. (A) Spatiële distributie van transcriptoom-gedefinieerde clusters in de SP_BS3 osteosarcoom spatiële transcriptomische sectie. (B) Spatiële distributie van gedetecteerde genen per spot, weergegeven door nFeature_Spatial. (C) Spatiële expressiepatroon van PPARG over de SP_BS3 spots. (D) Spatiële distributie van de op CellAge gebaseerde senescentiescore. (E) Correlatieanalyse tussen PPARG-expressie en de spatiële op CellAge gebaseerde senescentiescore of scores voor de ecologische celniche. (F) Label-transfer voorspellingskaart die het dominante, uit single-cell afgeleide celtype voor elke spatiële spot laat zien. (G) Correlatieanalyse tussen PPARG-expressie, de op CellAge gebaseerde senescentiescore en de via label-transfer afgeleide voorspellingsscores voor celtypen. (H) Spatiële distributie van PPARG-hoge en PPARG-lage spots. Klik hier om een grotere versie van deze figuur te bekijken.
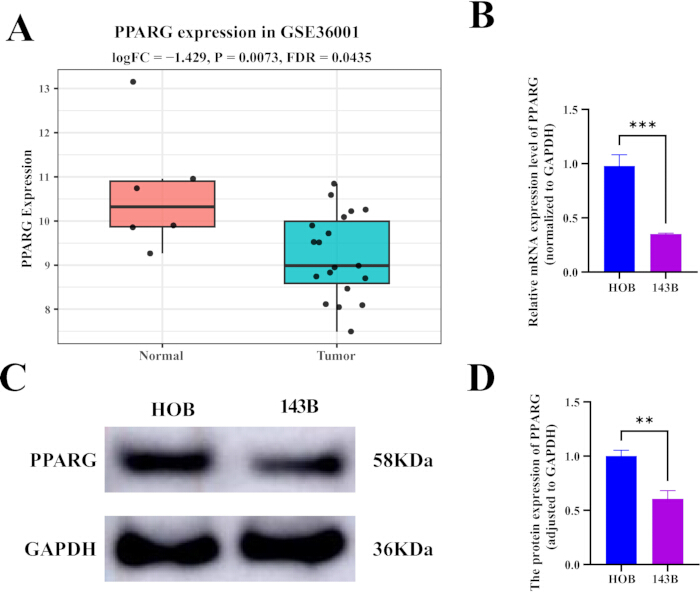
Figuur 6: Externe expressie en experimentele validatie van PPARG-downregulatie bij osteosarcoom. (A) Boxplot die de PPARG-expressieniveaus laat zien in osteosarcoommonsters (n = 19) en normale controlemonsters (n = 6) in de GSE36001-dataset. (B) qRT-PCR-analyse van PPARG mRNA-expressie in menselijke osteosarcoom 143B-cellen en menselijke osteoblastcontrolecellen. (C) Representatieve Western blot die de eiwitexpressie van PPARG en GAPDH laat zien in menselijke osteoblastcontrolecellen en osteosarcoom 143B-cellen. GAPDH werd gebruikt als loading control. (D) Densitometrische kwantificering van Western blot-banden die de relatieve PPARG-eiwitniveaus laten zien, genormaliseerd naar GAPDH. In (B) en (D) worden de gegevens gepresenteerd als het gemiddelde ± SD van drie onafhankelijke experimenten. P < 0,01 en P < 0,001 ten opzichte van de menselijke osteoblastcontrolegroep, bepaald met een tweezijdige ongepaarde Student's t-test. Afkortingen: qRT-PCR = quantitative reverse-transcription polymerase chain reaction; GAPDH = glyceraldehyde-3-fosfaatdehydrogenase; SD = standaarddeviatie. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende Tabel 1: Prestaties van het uitsluitend klinische Cox-model in de TARGET-OS cohort. C-index, AIC en modeloverzicht van het Cox-model dat uitsluitend is geconstrueerd met klinische variabelen, waaronder geslacht, leeftijd, ziektestatus bij diagnose, primaire tumorlocatie, specifieke tumorregio en status van definitieve chirurgie. Afkorting: AIC = Akaike-informatiecriterium. Klik hier om dit bestand te downloaden.
Aanvullende Tabel 2: Vergelijking tussen uitsluitend klinische en klinische-plus-gen Cox-modellen. Resultaten van de modelvergelijking na toevoeging van individuele kandidaat-hubgenen aan het klinische model, inclusief C-index, AIC, statistieken van de likelihood-ratio-toets en metrieken voor modelverbetering. Afkorting: AIC = Akaike-informatiecriterium. Klik hier om dit bestand te downloaden.
Aanvullende Tabel 3: Sensitiviteitsanalyse na verwijdering van de variabele definitieve chirurgie. Resultaten van de sensitiviteits-Cox-regressie waarin werd geëvalueerd of de prognostische associaties van kandidaat-hubgenen, in het bijzonder PPARG, stabiel bleven nadat de variabele definitieve chirurgie uit het aangepaste klinische model was weggelaten. Klik hier om dit bestand te downloaden.
Aanvullende Tabel 4: PPARG-geassocieerde immuun- en stromale micro-omgevingssignaturen in TARGET-OS. Correlatie- en groepvergelijkingsresultaten tussen PPARG-expressie en immuun-, stromale, vasculaire, inflammatoire en SASP-gerelateerde ssGSEA-signaturen, inclusief Spearman-correlatiecoëfficiënten, P-waarden, gecorrigeerde P-waarden en vergelijkingen tussen PPARG-hoog versus PPARG-laag. Afkortingen: SASP = senescence-associated secretory phenotype; ssGSEA = single-sample gene set enrichment analysis. Klik hier om dit bestand te downloaden.
Aanvullende tabel 5: Ruimtelijke transcriptomische correlatieanalyse van PPARG in SP_BS3. Correlatieresultaten tussen de expressie van PPARG en de ruimtelijke, op CellAge gebaseerde senescentiescore, scores voor de ecologische niche van cellen en scores voor de voorspelling van celtypen afgeleid van labeltransfer in de SP_BS3 osteosarcoom ruimtelijke transcriptomische sectie. Klik hier om dit bestand te downloaden.
Discussie
Deze studie heeft PPARG aangewezen als een kandidaat-prognostisch gen gerelateerd aan senescentie bij osteosarcoom door de integratie van differentiële expressieanalyse, CellAge-genintersectie, TARGET-OS survivalmodellering, klinische aanpassing, multi-omische lokalisatie en experimentele validatie. Dit analytische kader was consistent met de huidige nadruk op moleculair onderbouwd onderzoek naar osteosarcoom en gecureerde senescentie-genbronnen voor de interpretatie van senescentie-gerelateerde biologie14,31. PPARG was downgereguleerd in osteosarcoom vergeleken met normaal weefsel, en een lagere PPARG-expressie was geassocieerd met een slechtere algehele overleving in TARGET-OS. Deze bevindingen suggereerden dat PPARG niet alleen transcriptioneel veranderd was in osteosarcoom, maar mogelijk ook klinisch relevante prognostische informatie bevat. Echter, omdat de selectie van kandidaten en de evaluatie van het model werden uitgevoerd in dezelfde TARGET-OS-cohort (85 patiënten, 27 overlijdensgebeurtenissen), was de waargenomen verbetering in modelprestaties gevoelig voor optimisme en overfitting; daarom moet de prognostische waarde van PPARG worden beschouwd als hypothese-genererend totdat deze is gevalideerd in een onafhankelijke overlevingscohort van osteosarcoom. Niettemin moet de biologie van PPARG op een contextafhankelijke manier worden geïnterpreteerd, omdat experimentele studies naar osteosarcoom zowel antitumorale effecten van PPAR-gamma/nucleaire receptor-modulatie als PPARG-geassocieerde osteoclast-programma's hebben gerapporteerd die de ziekteprogressie kunnen ondersteunen32,33,34.
Een belangrijk nuancepunt was dat PPARG niet geïnterpreteerd mag worden als een simpele surrogaat voor de totale CellAge-score. In bulk TARGET-OS-gegevens was PPARG niet significant gecorreleerd met de globale CellAge-senescentiescore, terwijl PPARG in ruimtelijke transcriptomica een zwakke maar significante correlatie vertoonde met een CellAge-score die was berekend na uitsluiting van PPARG. Dit verschil kan het gevolg zijn van effecten door celcompositie in bulkgegevens, de multifunctionele aard van genensets voor senescentie en lokale verrijking van micro-omgevingsniches in ruimtelijke spots. Consensus- en transcriptomische studies hebben benadrukt dat cellulaire senescentie heterogeen en dynamisch is, en afhankelijk is van het celtype, de stressfactor en de weefselcontext, terwijl SASP-programma's tegengestelde effecten kunnen uitoefenen tijdens de progressie van kanker25,35,36,37. PPARG werd daarom conservatief gedefinieerd als een CellAge-afgeleid, senescentie-gerelateerd prognostisch gen, in plaats van als een bewezen drijver van senescentie. Bijgevolg weerspiegelde de senescentie-gerelateerde aanduiding van PPARG het lidmaatschap van de CellAge-genenset en niet een aangetoonde mechanistische betrokkenheid bij senescentie; PPARG mag daarom niet worden gebruikt als een kwantitatieve surrogaat voor de algehele senescentie-activiteit.
In algemene zin illustreerden deze ruimtelijke resultaten het onderscheid tussen statistische significantie en biologische relevantie. Met 4.572 ruimtelijke spots konden zelfs zeer zwakke correlaties de conventionele significantiedrempels overschrijden; zo verklaarde de correlatie tussen PPARG en de ruimtelijke CellAge-senescentiescore (ρ = 0,0692) slechts ongeveer 0,48% van de variantie, maar werd er toch een P-waarde van 3,0 × 10⁻⁶ bereikt omdat het grote aantal spots voor aanzienlijke statistische kracht zorgde. Dergelijke associaties op spot-niveau moeten daarom worden beschouwd als statistisch detecteerbare maar biologisch bescheiden, hypothese-genererende signalen, en hun effectgroottes, in plaats van alleen hun P-waarden, zouden de biologische interpretatie moeten sturen. Statistische significantie in grote datasets op spot-niveau mag niet worden gelijkgesteld aan sterke biologische effecten.
Single-cell- en ruimtelijke analyses boden een biologische context voor PPARG. PPARG was verrijkt in endotheelcellen, pericyten, macrofagen/monocyten en tumor-geassocieerde stromale cellen, en was ruimtelijk geassocieerd met scores voor endotheelcellen en pericyten. Deze resultaten suggereerden dat de prognostische informatie die door PPARG wordt gedragen, gekoppeld kan zijn aan vasculaire en micro-omgevingscompartimenten in osteosarcoom. Deze interpretatie was compatibel met recente single-cell/ruimtelijke atlassen van osteosarcoom en met bredere bewijzen dat immuun-, vasculaire en stromale niches de tumorheterogeniteit, behandelrespons en progressie vormgeven25,38,39. Omdat maligne osteosarcoomcellen PPARG slechts in een subset van cellen tot expressie brachten en geen significant hogere expressie vertoonden dan andere cellen, zou een interpretatie die uitsluitend gericht is op tumorcellen onvolledig zijn geweest. Omgekeerd kan de op bulk-niveau waargenomen downregulatie van PPARG in GSE99671 en GSE36001 gedeeltelijk het gevolg zijn van verschillen in de samenstelling van stromale, vasculaire, beenmerg-, adipogene of immuuncellen tussen tumor- en normaal weefsel, in plaats van een werkelijke downregulatie in maligne osteosarcoomcellen. Omdat tumorzuiverheid en celtype-abundantie niet expliciet werden gecorrigeerd in de bulk-analyses, kon deze mogelijkheid niet worden uitgesloten en was gericht onderzoek hiertoe gerechtvaardigd.
Analyses van de functionele en immunologische micro-omgeving waren consistent met deze interpretatie. PPARG correleerde met signaturen van macrofagen, CD8 T-cellen, dendritische cellen, neutrofielen, NK-cellen en endotheelcellen, en GSEA belichtte pathways gerelateerd aan inflammatie, NF-κB, JAK-STAT/IL-12-signalering, TP53-regulatie en DNA-schade-checkpoints. Samen suggereerden deze resultaten dat PPARG een samengestelde micro-omgevingsstatus kan markeren die senescentie-geassocieerde stress, immuuninfiltratie en vasculaire en stromale compartimenten omvat. Deze interpretatie was biologisch plausibel omdat PPAR-gamma gevestigde rollen heeft bij het onderdrukken van de inflammatoire activatie van macrofagen/monocyten, inclusief effecten op transcriptionele programma's gerelateerd aan AP-1, STAT en NF-κB, en omdat de immuunmicro-omgeving van osteosarcoom myeloïde, lymfoïde en vasculaire elementen bevat met zowel tumorbevorderende als tumorsuppressieve functies38,40,41. Deze single-cell en ruimtelijke observaties waren beschrijvend en hypothese-genererend; ze stelden op zichzelf geen vasculaire niche-mechanismen, senescentie-programma's of prognostische pathways vast.
Verschillende beperkingen moeten worden erkend. Ten eerste was de belangrijkste prognostische analyse gebaseerd op de retrospectieve publieke TARGET-OS-cohort, met een beperkte steekproefomvang en een beperkt aantal gebeurtenissen; daarom moet de prognostische waarde van PPARG worden gevalideerd in onafhankelijke cohorten in overeenstemming met algemeen aanvaarde principes voor rapportage en validatie van tumormarkers42. In het bijzonder werd de screening van kandidaten uitgevoerd bij 85 TARGET-OS-patiënten met 27 sterfgevallen, terwijl de evaluatie van het klinisch-gecorrigeerde model gebruikmaakte van de overlappende subset van 40 patiënten met 13 sterfgevallen. Omdat beide analyses zijn afgeleid van dezelfde broncohort, zijn de gerapporteerde verbetering van de C-index (0,707 naar 0,829) en de AIC-reductie waarschijnlijk optimistisch. Er was geen onafhankelijke survival-cohort beschikbaar om de prognostische waarde van PPARG extern te valideren; GSE36001 werd uitsluitend gebruikt voor validatie van de expressie in tumor-versus-normaal weefsel. Daarnaast was de geïntegreerde hub-score een exploratieve interne ranking-heuristiek en geen gevalideerd prognostisch instrument. Ten tweede was de ruimtelijke transcriptomische analyse gebaseerd op één enkel SP_BS3-monster; hoewel de correlaties statistisch significant waren, waren de effectgroottes klein en is validatie in aanvullende ruimtelijke monsters vereist. In het bijzonder zal het verhogen van het aantal ruimtelijke transcriptomische monsters van onafhankelijke patiënten essentieel zijn voor het verkrijgen van robuustere schattingen van deze zwakke associaties, en zijn studies op basis van grotere ruimtelijke cohorten gerechtvaardigd. Ruimtelijke transcriptomica biedt een waardevolle in situ moleculaire context, maar de interpretatie blijft beïnvloed door platformresolutie, bemonsteringsstrategie, weefselkwaliteit en keuzes bij de computationele integratie43. Bovendien steunde de ruimtelijke analyse op een voorbewerkte publieke single-cell-object met vereenvoudigde annotaties en op computationele scoring en labeltransfer; gezien de minimale effectgroottes ondersteunden deze gegevens beschrijvende lokalisatieverklaringen eerder dan mechanistische claims over vasculaire niches of senescentieprogramma's. Ten derde was de experimentele validatie gebaseerd op de osteosarcoom-cellijn 143B en menselijke osteoblasten; aanvullende osteosarcoom-cellijnen en klinische monsters zijn nodig, en validatie in een enkele cellijn kan geen celtype-specificiteit, klinische prognostische relevantie of senescentiebiologie vaststellen. Ten vierde toonde deze studie een associatie aan in plaats van causaliteit. Functionele perturbatie van PPARG in osteosarcoomcellen en micro-omgevingsmodellen zal nodig zijn om te bepalen of PPARG direct senescentie-gerelateerde programma's, vasculaire niches of tumorprogressie reguleert. Ten vijfde werd de relatie tot senescentie gedefinieerd door overlap met de CellAge-genenset, en PPARG correleerde niet met de bulk CellAge-senescentiescore in TARGET-OS. Bovendien werden bulk tumor-versus-normaal vergelijkingen niet gecorrigeerd voor tumorzuiverheid of celtype-compositie, waardoor de waargenomen downregulatie gedeeltelijk verschillen in de compositie van de micro-omgeving kan weerspiegelen in plaats van intrinsieke veranderingen in de maligne cel.
PPARG is een gen afgeleid van CellAge waarvan een lagere expressie wordt geassocieerd met een ongunstige algehele overleving in de TARGET-OS-cohort. De neerwaartse regulatie ervan in bulk-osteosarcoomvergelijkingen, samen met de verrijking in vasculaire, myeloïde en stromale compartimenten, suggereert dat bulk-PPARG-niveaus mogelijk gedeeltelijk de celcompositie van de micro-omgeving weerspiegelen in plaats van de intrinsieke expressie in maligne cellen. De single-cell en ruimtelijke bevindingen zijn beschrijvend, en de prognostische associatie werd niet onafhankelijk gevalideerd voor overleving en vereist validatie in een externe cohort met overlevingsuitkomsten. Deze bevindingen nomineren PPARG als een kandidaat-biomarker voor prognostische beoordeling bij osteosarcoom en voor onderzoek naar senescentie-gerelateerde micro-omgevingen, in afwachting van externe validatie en functionele studies. In ruimtelijke transcriptomica waren de correlaties tussen PPARG en de scores voor de senescentie-gerelateerde of vasculaire niche gering in effectgrootte, hoewel ze statistisch significant waren vanwege het grote aantal ruimtelijke spots, en moeten daarom met voorzichtigheid worden geïnterpreteerd.
Openbaarmakingen
De auteurs verklaren dat er geen concurrerende belangen zijn.
AUTORBIJDRAGEN:
Yongwen Li en Wentao Qin hebben de studie bedacht en ontworpen. Yongwen Li voerde de bio-informatische en computationele analyses uit. Tuo Liang voerde de experimentele validatie uit. Rubiao Qiu en Zide Zhang droegen bij aan de voorbereiding van de figuren. Rubiao Qiu en Zide Zhang hielden toezicht op de studie en reviseerden het manuscript kritisch. Alle auteurs hebben het definitieve manuscript beoordeeld en goedgekeurd
Dankbetuigingen
De auteurs danken de onderzoekers en bijdragers van de GEO, TARGET-OS, UCSC Xena, CellAge, MSigDB en de projecten voor de atlas van single-cell en ruimtelijke transcriptomica van menselijk osteosarcoom hartelijk voor het verstrekken van publiek toegankelijke datasets en bronnen die deze studie mogelijk hebben gemaakt. Dit werk werd ondersteund door de Guangxi Natural Science Foundation (Nr. 2023GXNSFAA026111).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Anti-GAPDH primair antilichaam | Proteintech Group, Wuhan, China | 10494-1-AP | Primair antilichaam gebruikt om GAPDH te detecteren als ladingscontrole bij western blotting; verdunning 1:5.000. |
| Anti-PPARG primair antilichaam | Proteintech Group, Wuhan, China | 16643-1-AP | Primair antilichaam gebruikt voor detectie van PPARG-eiwit via western blotting; verdunning 1:1.000. |
| BCA-eiwitassaykit | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | PC0020 | Colorimetrische assay gebruikt om de totale eiwitconcentratie voor elektroforese te bepalen. |
| DESeq2 | Bioconductor | Version 1.40.2 | R-pakket gebruikt voor differentiële genexpressieanalyse van transcriptomische data op basis van counts. |
| Dulbecco's modified Eagle's medium (DMEM) | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | 11995 | Basaal kweekmedium gebruikt voor het onderhoud van 143B osteosarcoomcellen. |
| ECL-detectiereagens | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | PE0010 | Chemiluminescent substraat gebruikt voor detectie van HRP-geconjugeerde antilichamen bij western blotting. |
| Foetaal runderserum (FBS) | Zhejiang Tianhang Biotechnology Co., Ltd. (Sijiqing), Huzhou, Zhejiang, China | 11011-8611 | Serumsupplement toegevoegd aan het kweekmedium om celgroei en levensvatbaarheid te ondersteunen. |
| glmnet | CRAN | Version 4.1-8 | R-pakket gebruikt voor gepenaliseerde regressieanalyses, waaronder LASSO- en elastic-net-modellering. |
| GraphPad Prism | GraphPad Software, San Diego, CA, USA | Version 9.0 | Software gebruikt voor statistische analyse, het genereren van grafieken en visualisatie van experimentele data. |
| HRP-geconjugeerd secundair antilichaam | Proteintech Group, Wuhan, China | SA00001-2 | Met mierikswortelperoxidase geconjugeerd secundair antilichaam gebruikt voor western blot-detectie; verdunning 1:5.000. |
| Humane osteoblastcellen | Cell Applications, Inc., San Diego, CA, USA | 406-05A | Primaire humane osteoblastcellen gebruikt als niet-maligne vergelijkings-/controleceltype. |
| Humane osteosarcoom 143B-cellijn | American Type Culture Collection (ATCC), Manassas, VA, USA | CRL-8303 | Humane osteosarcoom-cellijn gebruikt voor in vitro validatie-experimenten en moleculaire assays. |
| ImageJ | National Institutes of Health (NIH), USA | Version 1.53 | Beeldanalyse-software gebruikt voor kwantitatieve analyse van experimentele beelden. |
| limma | Bioconductor | Version 3.56.2 | R-pakket gebruikt voor differentiële expressieanalyse en statistische toetsing op basis van lineaire modellen. |
| Penicilline-streptomycine | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | P1400 | Antibioticumsupplement gebruikt in celkweekmedium om bacteriële contaminatie te verminderen. |
| PPARG- en GAPDH-primers | Sangon Biotech (Shanghai) Co., Ltd., Shanghai, China | Custom synthesis; sequences provided in the Methods | Op maat gemaakte oligonucleotidprimers gebruikt voor qPCR-analyse van PPARG- en GAPDH-expressie. |
| PVDF-membranen, 0,45 µm | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | YA1701 | Membranen gebruikt voor eiwitoverdracht tijdens western blotting. |
| R statistische software | R Foundation for Statistical Computing, Vienna, Austria | Version 4.3.2 | Statistische computeromgeving gebruikt voor bioinformatische analyses, modelconstructie en visualisatie. |
| randomForestSRC | CRAN | Version 3.2.2 | R-pakket gebruikt voor random survival forest-modellering en feature-belanganalyse. |
| Reverse transcriptiekit | Beyotime Biotech Inc., Shanghai, China | D7168M | Gebruikt voor synthese van complementair DNA (cDNA) uit geïsoleerd RNA voorafgaand aan kwantitatieve PCR. |
| RIPA-lysisbuffer | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | R0010 | Eiwitextractiebuffer gebruikt om cellen te lyseren voor western blot-analyse. |
| Seurat | Satija Laboratory | Version 5.0.1 | R-pakket gebruikt voor verwerking, integratie, clustering en visualisatie van single-cell RNA-sequencingdata. |
| survival | CRAN | Version 3.5-7 | R-pakket gebruikt voor overlevingsanalyse, waaronder Cox proportional hazards-modellering. |
| SYBR Green qPCR mastermix | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | SR1110 | Fluorescerende mastermix gebruikt voor kwantitatieve real-time PCR-amplificatie. |
| timeROC | CRAN | Version 0.4 | R-pakket gebruikt om tijdsafhankelijke receiver operating characteristic-curven te genereren en voorspellende prestaties over tijd te berekenen. |
| TRIzol-reagens | Invitrogen, Thermo Fisher Scientific, Waltham, MA, USA | 15596026CN | Reagens gebruikt voor extractie van totaal RNA uit gekweekte cellen. |
| Trypsine-EDTA, 0,25% | Beijing Solarbio Science & Technology Co., Ltd., Beijing, China | T1300 | Cel-dissociatiereagens gebruikt voor het passeren en oogsten van adherente cellen. |
Referenties
- Mirabello L, Troisi RJ, Savage SA. Osteosarcoma incidence and survival rates from 1973 to 2004: data from the Surveillance, Epidemiology, and End Results Program. Cancer. 2009;115:1531-1543.
- Bielack SS, et al. Prognostic factors in high-grade osteosarcoma of the extremities or trunk: an analysis of 1,702 patients treated on neoadjuvant cooperative osteosarcoma study group protocols. J Clin Oncol. 2002;20:776-790.
- Isakoff MS, Bielack SS, Meltzer P, Gorlick R. Osteosarcoma: Current Treatment and a Collaborative Pathway to Success. J Clin Oncol. 2015;33:3029-3035.
- Kansara M, Teng MW, Smyth MJ, Thomas DM. Translational biology of osteosarcoma. Nat Rev Cancer. 2014;14:722-735.
- Peng P, et al. Epigenetic remodeling under oxidative stress: Mechanisms driving tumor metastasis. MedComm - Oncology. 2024;3.
- Muñoz-Espín D, Serrano M. Cellular senescence: from physiology to pathology. Nat Rev Mol Cell Biol. 2014;15:482-496.
- Coppé JP, Desprez PY, Krtolica A, Campisi J. The senescence-associated secretory phenotype: the dark side of tumor suppression. Annu Rev Pathol. 2010;5:99-118.
- Collado M, Serrano M. Senescence in tumours: evidence from mice and humans. Nat Rev Cancer. 2010;10:51-57.
- Lehrke M, Lazar MA. The many faces of PPARgamma. Cell. 2005;123:993-999.
- Peters JM, Shah YM, Gonzalez FJ. The role of peroxisome proliferator-activated receptors in carcinogenesis and chemoprevention. Nat Rev Cancer. 2012;12:181-195.
- Barrett T, et al. NCBI GEO: archive for functional genomics data sets--update. Nucleic Acids Res. 2013;41.
- Ho XD, et al. Whole transcriptome analysis identifies differentially regulated networks between osteosarcoma and normal bone samples. Exp Biol Med (Maywood). 2017;242:1802-1811.
- Love MI, Huber W, Anders S. Moderated estimation of fold change and dispersion for RNA-seq data with DESeq2. Genome Biol. 2014;15:550.
- Avelar RA, et al. A multidimensional systems biology analysis of cellular senescence in aging and disease. Genome Biol. 2020;21:91.
- Goldman MJ, et al. Visualizing and interpreting cancer genomics data via the Xena platform. Nat Biotechnol. 2020;38:675-678.
- Prentice RL, Zhao S. Regression Models and Multivariate Life Tables. J Am Stat Assoc. 2021;116:1330-1345.
- Heagerty PJ, Lumley T, Pepe MS. Time-dependent ROC curves for censored survival data and a diagnostic marker. Biometrics. 2000;56:337-344.
- Tibshirani R. The lasso method for variable selection in the Cox model. Stat Med. 1997;16:385-395.
- Jaeger BC, et al. OBLIQUE RANDOM SURVIVAL FORESTS. Ann Appl Stat. 2019;13:1847-1883.
- Subramanian A, et al. Gene set enrichment analysis: a knowledge-based approach for interpreting genome-wide expression profiles. Proc Natl Acad Sci U S A. 2005;102:15545-15550.
- Newman AM, et al. Robust enumeration of cell subsets from tissue expression profiles. Nat Methods. 2015;12:453-457.
- Zhou Y, et al. Single-cell RNA landscape of intratumoral heterogeneity and immunosuppressive microenvironment in advanced osteosarcoma. Nat Commun. 2020;11:6322.
- Stuart T, et al. Comprehensive Integration of Single-Cell Data. Cell. 2019;177:1888-1902.e21.
- Hao Y, et al. Integrated analysis of multimodal single-cell data. Cell. 2021;184:3573-3587.e29.
- Zheng X, et al. A single-cell and spatially resolved atlas of human osteosarcomas. J Hematol Oncol. 2024;17:71.
- Ståhl PL, et al. Visualization and analysis of gene expression in tissue sections by spatial transcriptomics. Science. 2016;353:78-82.
- Kresse SH, et al. Integrative analysis reveals relationships of genetic and epigenetic alterations in osteosarcoma. PLoS One. 2012;7.
- Ritchie ME, et al. limma powers differential expression analyses for RNA-sequencing and microarray studies. Nucleic Acids Res. 2015;43.
- Livak KJ, Schmittgen TD. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) Method. Methods. 2001;25:402-408.
- Schneider CA, Rasband WS, Eliceiri KW. NIH Image to ImageJ: 25 years of image analysis. Nat Methods. 2012;9:671-675.
- Gill J, Gorlick R. Advancing therapy for osteosarcoma. Nat Rev Clin Oncol. 2021;18:609-624.
- Sun L, et al. Single-cell RNA sequencing revealed PPARG promoted osteosarcoma progression: based on osteoclast proliferation. Front Immunol. 2024;15:1506225.
- Yuan B, et al. Nuclear receptor modulators inhibit osteosarcoma cell proliferation and tumour growth by regulating the mTOR signaling pathway. Cell Death Dis. 2023;14:51.
- Lu Y, et al. Oridonin exerts anticancer effect on osteosarcoma by activating PPAR-γ and inhibiting Nrf2 pathway. Cell Death Dis. 2018;9:15.
- Gorgoulis V, et al. Cellular Senescence: Defining a Path Forward. Cell. 2019;179:813-827.
- Faget DV, Ren Q, Stewart SA. Unmasking senescence: context-dependent effects of SASP in cancer. Nat Rev Cancer. 2019;19:439-453.
- Hernandez-Segura A, et al. Unmasking Transcriptional Heterogeneity in Senescent Cells. Curr Biol. 2017;27:2652-2660.e4.
- Tian H, et al. Managing the immune microenvironment of osteosarcoma: the outlook for osteosarcoma treatment. Bone Res. 2023;11:11.
- Hanahan D. Hallmarks of Cancer: New Dimensions. Cancer Discov. 2022;12:31-46.
- Ricote M, Li AC, Willson TM, Kelly CJ, Glass CK. The peroxisome proliferator-activated receptor-gamma is a negative regulator of macrophage activation. Nature. 1998;391:79-82.
- Jiang C, Ting AT, Seed B. PPAR-gamma agonists inhibit production of monocyte inflammatory cytokines. Nature. 1998;391:82-86.
- McShane LM, et al. REporting recommendations for tumour MARKer prognostic studies (REMARK). Br J Cancer. 2005;93:387-391.
- Moses L, Pachter L. Publisher Correction: Museum of spatial transcriptomics. Nat Methods. 2022;19:628.