Deze studie evalueert de beschermende effecten van Yangjing Capsule op cyclofosfamide-geïnduceerde spermatogene dysfunctie bij muizen en onderzoekt de betrokkenheid van de lncRNA NONMMUT031883.2/QKI-5/p38 MAPK-signaalroute.
Een abonnement op JoVE is vereist om deze inhoud te bekijken. Log in of start vandaag met uw gratis proefperiode.
Onderzoeksartikel
Yangjing-capsules verlichten spermatogene dysfunctie bij muizen door remming van het QKI-5/p38 MAPK-pad via upregulatie van lncRNA NONMMUT031883.2
In dit artikel
Samenvatting
Samenvatting
Spermatogene dysfunctie is een belangrijke oorzaak van mannelijke onvruchtbaarheid, en cyclofosfamide (CP) kan de spermatogenese belemmeren door abnormale apoptose van spermatogonia te induceren. Yangjing Capsule (YC) is gebruikt om de reproductieve functie te verbeteren, maar het onderliggende moleculaire mechanisme blijft onduidelijk. Deze studie onderzocht de beschermende effecten van YC in een door CP geïnduceerd muismodel van spermatogene dysfunctie en in GC-1 spermatogoniale cellen. Het aantal zaadcellen en de motiliteit, de mannelijke fertiliteit, de serumspiegels van geslachtshormonen en histopathologische veranderingen in de testikels en epididymides werden geëvalueerd. Cellevensvatbaarheid, lactaatdehydrogenase-afgifte, apoptose en apoptose-gerelateerde eiwitten werden beoordeeld in GC-1 cellen. Kwantitatieve reverse transcriptie-polymeraseketsreactie, RNA pull-down assays, immunofluorescentie en Western blotting werden gebruikt om lncRNA NONMMUT031883.2, Quaking-5 (QKI-5) en p38 mitogeen-geactiveerde proteïnekinase (MAPK) signalering te onderzoeken. YC verbeterde dosisafhankelijk de spermakwaliteit, de serumspiegels van geslachtshormonen, de morfologie van de voortplantingsorganen, de testiculaire histopathologie en de fertiliteit bij CP-behandelde muizen. In GC-1 cellen verhoogde YC de cellevensvatbaarheid en verminderde het de cellulaire schade en apoptose. LncRNA NONMMUT031883.2 vertoonde een fysieke interactie met QKI-5, en behandeling met YC verhoogde de expressie van lncRNA NONMMUT031883.2, terwijl de expressie van QKI-5 en de p38-fosforylering afnamen. Behandeling met YC remde de apoptose die werd geïnduceerd door lncRNA NONMMUT031883.2 knockdown in GC-1 cellen, terwijl QKI-5 overexpressie de anti-apoptotische effecten van YC verminderde. Deze bevindingen suggereren dat YC de door CP geïnduceerde spermatogene dysfunctie verlicht en dat de beschermende effecten worden gemedieerd door regulatie van het lncRNA NONMMUT031883.2/QKI-5/p38 MAPK-pad.
Inleiding
Spermatogene dysfunctie verwijst naar een reproductieve beperking veroorzaakt door abnormaliteiten in de productie, rijping of functie van spermatozoën in het mannelijke voortplantingsstelsel. Het wordt gekenmerkt door een verminderd aantal en een verminderde beweeglijkheid van spermatozoën en een verhoogde frequentie van spermatozoïenafwijkingen1,2. De pathogenese van spermatogene dysfunctie is complex en wordt geassocieerd met genetische factoren, auto-immuunziekten, omgevingsgifstoffen, door chemotherapie veroorzaakte schade en letsels aan de voortplantingsorganen3-5. Chemotherapeutische middelen zoals cyclofosfamide (CP) kunnen de zaadbuisjes in de testikels direct beschadigen en apoptose van spermatogonia induceren, wat bijdraagt aan mannelijke spermatogene dysfunctie6,7. Hormoonsubstitutietherapie, antioxidatieve supplementen en assistieve reproductietechnologieën worden momenteel als klinische interventies gebruikt. Deze benaderingen vertonen echter een inconsistente effectiviteit en aanzienlijke bijwerkingen8,9,10. Daarom is het identificeren van veilige en effectieve interventies en het verduidelijken van hun moleculaire doelwitten klinisch belangrijk voor het verbeteren van de fertiliteitsresultaten bij patiënten met spermatogene dysfunctie.
Chinese kruidengeneeskunde heeft potentieel getoond bij het beschermen van de mannelijke reproductieve functie en het behandelen van spermatogene dysfunctie vanwege de multitarget-eigenschappen en de relatief lage toxiciteit11,12. Yangjing Capsule (YC) is een traditioneel Chinees gepatenteerd geneesmiddel bestaande uit Rehmannia glutinosa, Epimedium, placenta, Polygonatum sibiricum, Angelica sinensis en andere Chinese kruidengeneesmiddelen. Het wordt gebruikt om de nieren en de essentie te tonificeren, het bloed en het merg te voeden en de reproductieve functie te reguleren13. Voorgaande studies hebben aangetoond dat YC de sexhormoonspiegels bij mannelijke dieren kan reguleren, de spermakwaliteit kan verbeteren, schade aan het testisweefsel kan herstellen en kan beschermen tegen reproductief letsel geïnduceerd door chemische agentia14,15. Spermatogoniale cellen vormen de basis van de spermatogenese, en abnormale spermatogoniale apoptose is een centrale gebeurtenis bij de ontwikkeling van spermatogene dysfunctie16. Er is ook gerapporteerd dat YC de levensvatbaarheid van spermatogonia verbetert, het aandeel cellen in de S-fase verhoogt en apoptose remt17. Echter, de beschermende effecten en specifieke moleculaire mechanismen bij CP-geïnduceerde spermatogene dysfunctie blijven onduidelijk.
Lange niet-coderende RNA's (lncRNA's) zijn RNA-moleculen langer dan 200 nucleotiden die geen eiwitcoderend vermogen hebben18. LncRNA's kunnen genexpressie reguleren via mechanismen zoals chromosomale silencing, chromatine-modificatie, genomische imprinting en transcriptionele activatie19,20. Het RNA-bindende eiwit Quaking-5 (QKI-5) neemt deel aan fysiologische en pathologische processen, waaronder celproliferatie en apoptose, door de alternatieve splicing van downstream-genen te reguleren21. De p38 mitogeen-geactiveerde proteïnkinase (MAPK)-route is betrokken bij de regulatie van apoptose en speelt ook een belangrijke rol bij de mannelijke fertiliteit en testiculaire ontwikkeling22,23. Een eerdere studie toonde aan dat overexpressie van QKI-5 de p38 MAPK-route activeert in hepatocellulaire carcinoomcellen24. Daarnaast werd aangetoond dat lncRNA NONMMUT074098.2 bindt aan QKI-5 in spermatogonia, terwijl knockdown van QKI-5 de p38 MAPK-route remde en de apoptose van spermatogonia verminderde25. Deze studie maakte gebruik van een door CP-geïnduceerd muismodel van spermatogene dysfunctie om te onderzoeken of YC de expressie van lncRNA NONMMUT031883.2 en de QKI-5/p38 MAPK-signaleringsas reguleert, waardoor abnormale apoptose van spermatogonia wordt verminderd en CP-geïnduceerde spermatogene dysfunctie wordt verlicht (Figuur 1). Het doel was om het moleculaire mechanisme achter de beschermende effecten van YC op de spermatogenese te verduidelijken en het begrip van de farmacologische rol ervan bij het beschermen van de mannelijke reproductieve functie te verbreden.
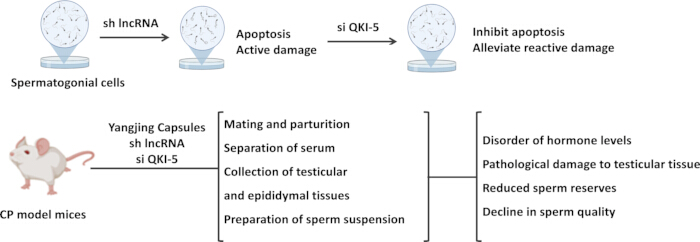
Figuur 1: Schematisch diagram van het experimentele ontwerp. Het bovenste paneel vat de in vitro experimenten in GC-1 spermatogoniale cellen samen. Knockdown van lncRNA NONMMUT031883.2 werd gebruikt om apoptose en cellulaire schade te induceren, gevolgd door QKI-5 knockdown om de effecten op apoptose en celbeschadiging te evalueren. Het onderste paneel vat de in vivo experimenten samen in muismodellen van spermatogene dysfunctie geïnduceerd door cyclofosfamide (CP). Muizen kregen een behandeling met Yangjing-capsules en/of een interventie met lncRNA NONMMUT031883.2 of QKI-5. Vervolgens werden de fertiliteit, serumhormoonspiegels, testiculaire en epididymale weefsels, spermasuspensie, spermareserves, spermakwaliteit en testiculaire histopathologische schade geëvalueerd. Klik hier om een grotere versie van deze figuur te bekijken.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Protocol
Alle dierproeven zijn uitgevoerd in overeenstemming met de ARRIVE-richtlijnen en de National Institutes of Health Guide for the Care and Use of Laboratory Animals. Alle experimentele protocollen zijn beoordeeld en goedgekeurd door de Ethische Commissie voor Dierenproeven van de Southeast University (goedkeuringsnummer 20230216022).
1. Bereiding van serum met YC
Twee Yangjing-capsules (YC; 0,5 g/capsule) werden geopend en er werd 0,8 g van de capsule-inhoud afgewogen. Er werd normale zoutoplossing toegevoegd tot een eindvolume van 10 mL, waarna het mengsel grondig werd gevortexd om een suspensie van 80 mg/mL te bereiden. Specifieke pathogeenvrije mannelijke BALB/c-muizen met een gewicht van 22–25 g en een leeftijd van 8 weken werden gehouden bij 22 °C en een luchtvochtigheid van 55%–60% onder een licht/donkercyclus van 12 u, met ad libitum beschikbaar gesteld voer en water. Na 1 week acclimatisatie kregen de muizen YC via orale gavage in een dosis van 800 mg/kg lichaamsgewicht in een volume van 10 mL/kg, éénmaal daags gedurende 5 opeenvolgende dagen. Twee uur na de laatste toediening werden de muizen geanestheseerd met intraperitonele 1% natriumpentobarbital en werden bloedmonsters verzameld om serum met YC te bereiden. Het serum werd geïnactiveerd bij 56 °C gedurende 30 min, gefiltreerd door een 0,22 µm membraan en bewaard bij −80 °C tot gebruik.
2. Celkweek en transfectie
Muis GC-1 spermatogoniale cellen werden gekweekt in DMEM bevattend 1% penicilline-streptomycine en 10% foetaal runderserum. Alle culturen werden bewaard bij 37 °C in een atmosfeer met 5% CO₂ (v/v).
LncRNA-specifiek short hairpin RNA (sh-lncRNA), een QKI-5 overexpressieplasmid (OE-QKI-5), QKI-5 small interfering RNA (si-QKI-5) en hun bijbehorende negatieve controles (sh-NC, OE-NC en si-NC) werden gesynthetiseerd en geconstrueerd. GC-1 cellen werden getransfecteerd met sh-lncRNA of sh-NC, si-QKI-5 of si-NC, of OE-QKI-5 of OE-NC volgens de instructies van het transfectiereagens. Na incubatie gedurende 48 h werd de transfectie-efficiëntie beoordeeld door de expressie van lncRNA NONMMUT031883.2 of QKI-5 te meten.
Voor de sh-lncRNA + si-QKI-5 + etoposide-groep werden GC-1-cellen getransfecteerd met sh-lncRNA en si-QKI-5 en vervolgens gedurende 12 h behandeld met 100 µM etoposide26. Voor de daaropvolgende celviabiliteitsassays werden GC-1-cellen gekweekt in medium aangevuld met 5%, 10% of 20% YC-bevattend serum en respectievelijk aangeduid als de laag-dosering YC (L-YC), medium-dosering YC (M-YC) en hoog-dosering YC (H-YC) groepen. De concentraties van het YC-bevattende serum (5%, 10% en 20% YC) werden bepaald op basis van de resultaten van preliminaire concentratie-gradiëntexperimenten. Voor de sh-lncRNA + H-YC + OE-NC en sh-lncRNA + H-YC + OE-QKI-5 groepen werden GC-1-cellen gedurende 48 h getransfecteerd met sh-lncRNA plus OE-NC of sh-lncRNA plus OE-QKI-5 en vervolgens gedurende 24 h blootgesteld aan 20% YC-bevattend serum.
3. Cell Counting Kit-8 assay
GC-1 cellen werden gezaaid in 96-well platen met 5 × 10³ cellen/well en gedurende 24 h gekweekt. Na celadhesie werd het oorspronkelijke medium vervangen door 100 µL compleet medium aangevuld met serum bevattend YC, en werden de cellen gedurende 6, 12 of 24 h geïncubeerd. Na incubatie werd 10 µL Cell Counting Kit-8 reagens aan elke well toegevoegd en werden de cellen 2 h in het donker geïncubeerd bij 37 °C. De absorbantie bij 450 nm werd gemeten met een microplaatlezer.
4. Lactate dehydrogenase-assay
Na transfectie met sh-NC of sh-lncRNA gedurende 48 h werd het kweekmedium van de GC-1-cellen verzameld en werd het supernatant verkregen door centrifugatie. Volgens de instructies van de lactate dehydrogenase-assaykit werd het supernatant voorzichtig gemengd met de detectiewerkoplossing en overgebracht naar een 96-wells plaat. De plaat werd 30 min geïncubeerd bij 25 °C in het donker. De absorbentie bij 490 nm werd gemeten met een microplaatlezer, en de afgifte van lactate dehydrogenase werd berekend om de celbeschadiging te beoordelen.
5. Calceïne AM/propidiumjodide-kleuring
Na transfectie met sh-NC of sh-lncRNA gedurende 48 u werd de overleving van GC-1-cellen beoordeeld met behulp van Calceïne AM/propidiumjodide (PI)-kleuring. Cellen werden gezaaid in 12-wells platen met 5 × 10⁴ cellen/well en gekweekt totdat ze een confluentie van 60%–70% bereikten. De cellen werden voorzichtig gespoeld met fosfaatgebufferde zoutoplossing, waarna 500 µL Calceïne AM/PI-kleuringsoplossing aan elke well werd toegevoegd. De cellen werden 30 min in het donker geïncubeerd bij 37 °C en geobserveerd onder een fluorescentiemicroscoop. Levende en dode cellen werden geteld met behulp van beeldanalyse-software, waarna het aandeel overlevende cellen werd berekend.
6. Flowcytometrie
GC-1 cellen werden verzameld door centrifugatie en voorzichtig gespoeld met fosfaatgebufferde zoutoplossing. De celpellet werd geresuspendeerd in 500 µL bindingsbuffer bij een dichtheid van 5 × 10⁵ cellen/mL. Vervolgens werden Annexin V-APC en PI toegevoegd (elk 5 µL), waarna de suspensie grondig werd gemengd en 10 min bij 25 °C in het donker werd geïncubeerd. Apoptose werd geanalyseerd via flowcytometrie met excitatie-/emissiegolflengten van 633/660 nm voor APC en 488/630 nm voor PI. De apoptosegraad werd geëvalueerd met behulp van analyse-software voor flowcytometrie.
7. Caspase-3-activiteitsassay
Na de aangegeven behandelingen werden ongeveer 1 × 10⁶ GC-1-cellen verzameld, gespoeld en geresuspendeerd in fosfaatgebufferde zoutoplossing. De cellen werden gemengd met 100 µL reagens II uit de caspase-3-activiteitsassaykit en gedurende 15 min op ijs gelyseerd. Na centrifugatie werden 50 µL van het lysaatsupernatant verzameld en gemengd met 40 µL reagens I en 10 µL reagens III. Het mengsel werd 2 u geïncubeerd bij 37 °C. De absorbentie bij 405 nm werd gemeten met een microplatelezer en de caspase-3-activiteit werd geëvalueerd volgens de instructies van de kit.
8. RNA pull-down assay
De sense- en antisense-strengen van lncRNA NONMMUT031883.2 werden gesynthetiseerd volgens de overeenkomstige sequentie en gelabeld met biotine. Cellen werden gedurende 30 min op ijs gelyseerd in immunoprecipitatie-cellysebuffer, waarna het eiwitbevattende supernatant door centrifugatie werd verzameld. Streptavidine-magnetische beads werden drie keer gewassen met RNA-bindingsbuffer en 30 min geïncubeerd in bindingsbuffer met 1% runderseerumeiwit.
De voorbehandelde beads werden gecombineerd met de biotine-gelabelde probes en 30 min geïncubeerd bij 25 °C. Ongebonden probes werden verwijderd via magnetische scheiding. Vervolgens werd het supernatant van het cellysaat toegevoegd, waarna het mengsel 4 u bij 4 °C werd geïncubeerd om magnetische bead-RNA-proteïnecomplexen te vormen. De magnetische beads werden drie keer gewassen met wasbuffer om aspecifiek gebonden proteïnen te verwijderen. De wasbuffer werd verwijderd via magnetische scheiding en er werd 2× SDS monsterlaadbuffer toegevoegd. De monsters werden 10 min verhit bij 95 °C, waarna het supernatant via magnetische scheiding werd verzameld voor een daaropvolgende Western blot-analyse.
9. Constructie van een muismodel voor spermatogene dysfunctie
Na 5 dagen acclimatisatie kregen specifieke pathogeenvrije mannelijke BALB/c muizen met een gewicht van 22–25 g en een leeftijd van 8 weken dagelijks één keer gedurende 7 dagen cyclofosfamide (CP) intraperitoneaal toegediend in een dosis van 50 mg/kg om een model voor spermatogene dysfunctie te vestigen14,27. De succesvol gemodelleerde muizen werden met behulp van een willekeurige getallentabel willekeurig toegewezen aan de groepen CP, 200 mg/kg YC, 400 mg/kg YC, 800 mg/kg YC, 800 mg/kg YC + sh-NC en 800 mg/kg YC + sh-lncRNA, met zes muizen per groep.
Muizen in de met YC behandelde groepen kregen dagelijks één keer gedurende 30 dagen de corresponderende dosis YC via orale gavage13. Voor de groepen 800 mg/kg YC + sh-NC en 800 mg/kg YC + sh-lncRNA werden de muizen, na een succesvolle modelvestiging, geanestheseerd door inhalatie van 2% isofluraan. Nadat was bevestigd dat elke muis geen terugtrekreflex van de poot vertoonde en dat de ademhalingsfrequentie stabiel was, werd de chirurgische plaats geschoren en gedesinfecteerd met povidon-jodium. Onder aseptische omstandigheden werd een ventrale mediane incisie gemaakt door de huid en de lichaamswand anterior van de genitaliën. De testis werd blootgelegd door voorzichtig het epididymale vetkussen te manipuleren, waarbij zorgvuldig werd gewaakt voor vaatschade. Met behulp van een micromanipulator werden de zaadbuisjes gevisualiseerd en werd 1 µL van de adenovirale suspensie (1 × 10¹⁰ TU/mL) langzaam geïnjecteerd met een micro-injectienaald28. De naald bleef na de injectie 5 min op zijn plaats voordat deze langzaam werd teruggetrokken, en hemostase werd bereikt met een steriel wattenstaafje. Dezelfde procedure werd vervolgens uitgevoerd op de contralaterale testis. De incisie werd vervolgens gehecht en de muizen kregen de gelegenheid om postoperatief te herstellen op een verwarmingsmat. Controlemuizen kregen dagelijks een gelijk volume zoutoplossing via gavage en injectie.
10. Beoordeling van de fertiliteit
Na voltooiing van de drugstoediening werden de mannelijke muizen in elke groep gedurende 7 dagen vrij gekoppeld aan vrouwelijke BALB/c-muizen in een verhouding van 1:2. De vorming van vaginale plugs bij de vrouwelijke muizen werd dagelijks gemonitord en geregistreerd. Nadat een succesvolle paring was bevestigd, werden de mannelijke muizen verwijderd en werden de vrouwelijke muizen individueel gehuisvest tot de natuurlijke bevalling. Per groep werden negen drachtige vrouwelijke muizen verkregen en meegenomen in de analyse. De gemiddelde nestgrootte werd geregistreerd om de mannelijke fertiliteit in elke groep te evalueren.
Aan het einde van de experimentele periode werden de muizen geëuthanaseerd door intraperitoneuze toediening van pentobarbitalnatrium bij 100 mg/kg. Deze euthanasiemethode werd goedgekeurd door de Commissie voor Dierenethiek van de Southeast University (goedkeuringsnummer 20230216022). De testikels en epididymides werden zorgvuldig gescheiden, gefotografeerd en gewogen. De indices voor de testikels en epididymides werden berekend als orgaangewicht/lichaamsgewicht. Van elke muis werd één epididymis verzameld, in stukken gesneden, geplaatst in 1 mL voorverwarmde fosfaatgebufferde zoutoplossing (37 °C) en 20 min geïncubeerd om de spermaproductie vrij te laten komen29. De spermasuspensie werd voorzichtig gemengd en 10 µL van de spermasuspensie werd geplaatst op een voorverwarmde telkamer voor bloedcellen. De spermatozoïden werden handmatig geteld onder een lichtmicroscoop bij een vergroting van 200×, en de resultaten werden uitgedrukt als 106/L. Verder werd het percentage progressief beweeglijke spermatozoïden ten opzichte van het totaal aantal spermatozoïden berekend als spermamotiliteit13.
11. Bepaling van de geslachtsestroomspiegels
Bloed werd afgenomen uit de vena orbitalis van muizen in elke groep en gedurende 30 min bij 25 °C gelaten. Serum werd verzameld door centrifugatie bij 3,000 × g gedurende 10 min30. De serumspiegels van testosteron, luteïniserend hormoon (LH) en follikelstimulerend hormoon (FSH) werden gemeten met behulp van de overeenkomstige enzyme-linked immunosorbent assay-kits.
12. RNA-stabiliteitsassay
GC-1-cellen werden uitgezaaid in 96-wells kweekplaten, getransfecteerd met si-QKI-5 of si-NC en gedurende 48 h gekweekt. Vervolgens werd Actinomycine D toegevoegd in een concentratie van 5 µg/mL en werden de cellen verzameld op 0, 3, 6 en 9 h. Totaal RNA werd geïsoleerd en het relatieve expressieniveau van lncRNA NONMMUT031883.2 werd bepaald via kwantitatieve reverse transcription polymerase chain reaction na reverse transcriptie. Het relatieve RNA-niveau op elk tijdstip werd berekend waarbij het expressieniveau op 0 h als 100% werd gehanteerd.
13. Kwantitatieve reverse transcriptie polymerasekettingreactie
GC-1-cellen en testikularweefsels van muizen werden gespoeld met fosfaatgebufferde zoutoplossing en gelyseerd voor de isolatie van totaal RNA. Complementair DNA werd gegenereerd door reverse transcriptie met behulp van AMV reverse transcriptase. Polymerasekettingreactie-amplificatie werd uitgevoerd met een real-time PCR-systeem en een kwantitatieve PCR-kit, waarbij complementair DNA als amplificatietemplate werd gebruikt. U6 werd gebruikt als interne referentie voor lncRNA NONMMUT031883.2, en GAPDH werd gebruikt als de interne referentie voor QKI-5. De relatieve expressie van het doelgen werd berekend met de 2−ΔΔCt-methode25. RNA werd tevens afzonderlijk geïsoleerd uit de cytoplasmatische en nucleaire fracties om de subcellulaire lokalisatie van lncRNA NONMMUT031883.2 te bepalen. De primersequenties zijn opgenomen in Tabel 1.
| Gen | Forward primer (5' naar 3') | Reverse primer (5' naar 3') |
| QKI-5 | CTGTCATGCCAAACGGAAC | GATGGACACGCATATCGTG |
| GAPDH | AGGTCGGTGTGAACGGATTTG | TGTAGACCATGTAGTTGAGGTCA |
| lncRNA NONMMUT031883.2 | CCACTGTGGCACATTGAAGTA | TTAAGTTAATGGGTGCTGTGTT |
| U6 RNA | CTCGCTTCGGCAGCACA | AACGCTTCACGAATTTGCGT |
Tabel 1: Primersequenties gebruikt voor kwantitatieve reverse transcriptie polymerase kettingreactie. Forward- en reverse-primersequenties zijn vermeld in de 5′–3′ richting voor lncRNA NONMMUT031883.2, QKI-5, U6 en GAPDH.
14. Hematoxiline- en eosinekleuring
Testiculaire en epididymale weefsels van muizen werden ondergedompeld in 4% paraformaldehyde en gefixeerd bij 4 °C gedurende 24 h. Na spoelen met fosfaatgebufferde zoutoplossing werden de weefsels gedehydrateerd via een ethanolreeks met toenemende concentraties, ingebed in paraffine en gesneden in secties van 5 µm. De secties werden 60 min verhit bij 60 °C en 30 min ontwaxed in xyleen.
Na hydratatie via een gradiënt van ethanolseries werden de coupes 5 min gekleurd met hematoxyline, 10 s behandeld met een zoutzuur-ethanol differentiatie-oplossing, gewassen met kraanwater voor het blauwen en 2 min gekleurd met 1% eosine. De coupes werden vervolgens gedehydrateerd in 95% ethanol en absolute ethanol en 30 min geklaard in xyleen. Na luchtdrogen werden de coupes gemonteerd met neutrale gom. Morfologische veranderingen in de testes en epididymides werden onder een microscoop waargenomen.
15. Immunofluorescentie
Paraaffine coupes van muistestikels werden ontwasst en gehydrateerd via een reeks ethanolconcentraties, gevolgd door microwave-gemedieerde antigeen-retrieval in citraatbuffer bij pH 6.0. Na natuurlijk afkoelen tot kamertemperatuur werden de coupes 10 min geïncubeerd met 0.3% Triton X-100. De coupes werden geblokkeerd met 5% runderserumalbumine bij 25 °C gedurende 60 min, gespoeld met fosfaatgebufferde zoutoplossing en overnacht bij 4 °C geïncubeerd met een primair antilichaam tegen Ki67. De volgende dag werd een fluorochroom-gelabeld secundair immunoglobuline G-antilichaam aangebracht, waarna de coupes 60 min bij 37 °C in het donker werden geïncubeerd. Na spoelen met fosfaatgebufferde zoutoplossing werden de coupes 10 min tegengekleurd met DAPI en geobserveerd onder een fluorescentiemicroscoop. De fluorescentie-intensiteit werd geanalyseerd met behulp van beeldanalyse-software.
Voor immunofluorescentiekleuring van GC-1-cellen werden de cellen gezaaid in 12-wells platen met 1 × 10⁵ cellen/well en 24 h geïncubeerd. De cellen werden gefixeerd met 4% paraformaldehyde gedurende 30 min, gepermeabiliseerd met 0,3% Triton X-100 gedurende 10 min, geblokkeerd met 5% runder serumalbumine en overnacht bij 4 °C geïncubeerd met een primair antilichaam tegen QKI-5. De resterende procedure werd uitgevoerd zoals beschreven voor de coupes van testikulaire weefsels.
16. TUNEL-kleuring
Paraffinecoupes van muizenteisjes werden ontwast, gehydrateerd via een gradiënt van ethanol en 5 min geïncubeerd met 0,1% Triton X-100 om de permeabiliteit van het celmembraan te verhogen. Een werkoplossing van Proteinase K van 20 µg/mL zonder DNase werd gelijkmatig op de coupes aangebracht, waarna deze 15 min werden geïncubeerd bij 37 °C. Er werd TUNEL-detectieoplossing toegevoegd en de coupes werden 90 min in het donker geïncubeerd bij 37 °C. Na incubatie met DAPI gedurende 10 min werd een antifade montage-medium aangebracht en werd het testisweefsel geobserveerd onder een fluorescentiemicroscoop.
GC-1-cellen werden uitgezaaid in 12-wells platen en gefixeerd met 4% paraformaldehyde gedurende 30 min. Na permeabilisatie met 0,1% Triton X-100 gedurende 5 min werd de TUNEL-detectieoplossing op de cellen aangebracht, gevolgd door incubatie in het donker gedurende 60 min. De cellen werden vervolgens 10 min gekleurd met DAPI en geobserveerd onder een fluorescentiemicroscoop.
17. Western blotting
Testisweefsel van muizen en GC-1-cellen werden gedurende 30 min op ijs gelyseerd in immunoprecipitatie-cellysebuffer en gedisrumpeerd door middel van ultrasonificatie. Na centrifugatie werd het eiwitbevattende supernatant verzameld en werd de eiwitconcentratie bepaald met een bicinchoninezuur-assaykit. Het eiwitsupernatant werd gemengd met SDS-laadbuffer en 10 min verhit in kokend water. Na scheiding via gelelektroforese werden de eiwitten overgebracht op polyvinylideenfluoride-membranen en 2 u geblokkeerd met 5% runder serumalbumine31.
De membranen werden overnacht bij 4 °C geïncubeerd met primaire antilichamen tegen cleaved caspase-3 (1:500), Bcl-2 (1:1000), caspase-3 (1:2000), Bax (1:500), QKI-5 (1:1000), gefosforyleerd p38 (1:1000) of p38 (1:500). De volgende dag werden de membranen gespoeld met Tris-gebufferde zoutoplossing met Tween 20 en 2 uur lang bij 25 °C geïncubeerd met geiten-anti-konijn immunoglobuline G in een verdunning van 1:10000. De werkingsoplossing voor verbeterde chemiluminescentie werd op het membraanoppervlak aangebracht en de proteinebanden werden vastgelegd met een gel-beeldvormingssysteem. De bandintensiteit werd geanalyseerd met beeldanalyse-software en de relatieve proteïne-expressie werd genormaliseerd ten opzichte van GAPDH (1:3000).
Cycloheximide in een concentratie van 50 µg/mL werd gebruikt om de eiwitsynthese te remmen. Om de halfwaardetijd van QKI-5 te bepalen, werden cellen verzameld op 0, 3, 6 en 9 u, waarna de QKI-5 eiwitniveaus werden bepaald via Western blotting25.
18. Statistische analyse
Alle gegevens werden statistisch geanalyseerd en uitgezet met behulp van software voor statistiek, grafieken en beeldanalyse. De Shapiro-Wilk-test werd gebruikt om de normaliteit van de gegevens te beoordelen. Experimentele gegevens worden gepresenteerd als het gemiddelde ± standaarddeviatie. Eenweg-variantieanalyse werd gebruikt om verschillen tussen groepen te evalueren. De LSD-t-test werd gebruikt voor post-hoc paarsgewijze vergelijkingen wanneer de varianties homogeen waren, terwijl de T3-test van Dunnett werd gebruikt wanneer de varianties heterogeen waren. Een waarde van p < 0,05 werd beschouwd als statistisch significant.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Resultaten
Knockdown van lncRNA NONMMUT031883.2 induceert apoptose van spermatogonia
GC-1-cellen werden getransfecteerd met sh-lncRNA om de expressie van lncRNA NONMMUT031883.2 te reduceren. In vergelijking met sh-NC-getransfecteerde cellen was het transcriptieniveau van lncRNA NONMMUT031883.2 na sh-lncRNA-transfectie aanzienlijk verlaagd, wat een succesvolle knockdown bevestigt (Figuur 2A). Na knockdown van lncRNA NONMMUT031883.2 was de levensvatbaarheid van GC-1-cellen signific...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Discussie
Door chemotherapie veroorzaakte verworven spermatogene dysfunctie is een belangrijke oorzaak van mannelijke onvruchtbaarheid32,33,34. De specifieke moleculaire mechanismen zijn echter nog niet volledig begrepen. De resultaten van deze studie tonen aan dat Yangjing Capsule (YC) dosisafhankelijk de door cyclofosfamide (CP) geïnduceerde afwijkingen in geslachtshormonen, histopathologische schade aan de teelballen en fertiliteitssto...
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Openbaarmakingen
De auteurs verklaren dat er geen financiële of niet-financiële belangenverstrengelingen zijn.
Dankbetuigingen
Dit werk werd ondersteund door de National Natural Science Foundation of China (subsidienummer 82374257), de Fourth Batch of Peak Academic Talent Training Program of Jiangsu Provincial Hospital of Chinese Medicine (subsidienummer k2026yrc74), en de Scientific Research Projects of Traditional Chinese Medicine and Integrated Traditional Chinese and Western Medicine of Jiangsu Province (subsidienummer CYTF2026019).
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Actinomycine D | MedChemExpress, Monmouth Junction, NJ, USA | HY-17559 | Transcriptie-inhibitor gebruikt voor RNA-stabiliteitsassays |
| AMV reverse transcriptase | Takara, Tokyo, Japan | 2621 | Enzym voor synthese van complementair DNA |
| Annexine V-APC/PI detectiekit | BioLab Technology, Beijing, China | KFS191 | Kit voor flowcytometrische analyse van apoptose |
| Antifade monteermedium | MedChemExpress, Monmouth Junction, NJ, USA | HY-K1042 | Monteermedium voor fluorescentiebehoud |
| Bax primair antilichaam | Affinity Biosciences, OH, USA | AF0120 | Primair antilichaam voor detectie van Bax |
| BCA kit | Macklin, Shanghai, China | B917925 | Kit voor bepaling van de proteïneconcentratie |
| Bcl-2 primair antilichaam | Affinity Biosciences, OH, USA | AF0769 | Primair antilichaam voor detectie van Bcl-2 |
| Bovien serumalbumine | BioLab Technology, Beijing, China | BTN131070 | Blokkeringsreagens |
| Calceïne/PI detectiekit | Beyotime, Shanghai, China | C2015M | Kit voor levend/dood celkleuring |
| Caspase-3 activiteitsassay kit | BioLab Technology, Beijing, China | QN2866 | Kit voor het meten van de caspase-3 activiteit |
| Caspase-3 primair antilichaam | Abcam, MA, USA | ab184787 | Primair antilichaam voor detectie van caspase-3 |
| CCK-8 reagens | MedChemExpress, Monmouth Junction, NJ, USA | HY-K0301 | Reagens voor bepaling van de celviabiliteit |
| Gesplitste caspase-3 primair antilichaam | Abcam, MA, USA | ab32042 | Primair antilichaam voor detectie van gesplitste caspase-3 |
| Cycloheximide | Macklin, Shanghai, China | H823111 | Proteïnesynthese-inhibitor gebruikt voor proteïnestabiliteitsassays |
| Cyclofosfamide | MedChemExpress, Monmouth Junction, NJ, USA | HY-17420 | Gebruikt om spermatogene dysfunctie te induceren |
| DAPI reagens | Beyotime, Shanghai, China | C1006 | Nucleaire tegenkleuring |
| DMEM medium | Wuhan Sunncell Biotechnology, Hubei, China | SNLM-302 | Celkweekmedium voor GC-1 cellen |
| ECL werkoplossing | Solarbio, Beijing, China | SW2030 | Chemiluminescent substraat voor detectie van proteïnebanden |
| Etoposide | MedChemExpress, Monmouth Junction, NJ, USA | HY-13629 | Apoptose-inducerend agens |
| Flowcytometer | BD Biosciences, CA, USA | BD FACSCalibur | Instrument voor apoptoseanalyse |
| FlowJo software | BD Biosciences, CA, USA | v10.8 | Software voor analyse van flowcytometriegegevens |
| Fluorescentiemicroscoop | Leica, Heidelberg, Germany | DM3000 | Instrument voor fluorescentie-imaging |
| Fluorescentie-gelabeld secundair antilichaam IgG | Servicebio, Wuhan, China | GB22303 | Secundair antilichaam voor immunofluorescentiedetectie |
| Folliculostimulerend hormoon ELISA kit | Huamei Biotech, Wuhan, China | CSB-E06871m | Kit voor het meten van serum folliculostimulerend hormoon |
| GAPDH primair antilichaam | Affinity Biosciences, OH, USA | T0004 | Loading-control antilichaam voor Western blotting |
| GC-1 cellen | Wuhan Sunncell Biotechnology, Hubei, China | SNL-302 | Muis spermatogoniale cellijn |
| Gel-imaging systeem | Jinpeng Analysis Instrument, Shanghai, China | JP-2880 | Imaging systeem voor visualisatie van gels en blots |
| Gel-imaging systeem | Invitrogen, Carlsbad, CA, USA | iBright CL1500 | Chemiluminescent imaging systeem voor Western blots |
| Geit anti-konijn IgG | Servicebio, Wuhan, China | GB23303 | Secundair antilichaam voor Western blotting |
| Hematoxyline oplossing | BioLab Technology, Beijing, China | YT165 | Nucleaire kleuring voor histologische analyse |
| Zoutzuur ethanol differentiatie-oplossing | Beyotime, Shanghai, China | C0163S | Differentiatiereagens voor hematoxyline-kleuring |
| ImageJ software | National Institutes of Health, USA | 1.54h | Software voor beeldkwantificatie |
| IP cellysebuffer | Beyotime, Shanghai, China | P0013 | Lysebuffer voor immunoprecipitatie en proteïne-extractie |
| Ki67 primair antilichaam | Affinity Biosciences, OH, USA | AF0198 | Primair antilichaam voor detectie van Ki67 |
| LDH cytotoxiciteitsassay kit | Beyotime, Shanghai, China | C0016 | Kit voor het meten van lactaatdehydrogenase-afgifte en cellulaire schade |
| Lichtmicroscoop | Olympus, Tokyo, Japan | CKX53 | Gebruikt voor spermatelling en morfologische observatie |
| Lipofectamine 3000 | Invitrogen, Carlsbad, CA, USA | L3000001 | Transfectiereagens |
| Microplate reader | Molecular Devices, CA, USA | SpectraMax Mini | Instrument voor absorbentiemetingen |
| Muis luteïniserend hormoon ELISA kit | Huamei Biotech, Wuhan, China | CSB-E12770m | Kit voor het meten van serum luteïniserend hormoon |
| Muis testosteron ELISA kit | Huamei Biotech, Wuhan, China | CSB-E05101m | Kit voor het meten van serum testosteron |
| Neutrale gom | BioLab Technology, Beijing, China | QN1253 | Monteermedium voor histologische coupes |
| p38 primair antilichaam | Affinity Biosciences, OH, USA | AF6456 | Primair antilichaam voor detectie van totaal p38 |
| Paraformaldehyde | MedChemExpress, Monmouth Junction, NJ, USA | HY-Y0333 | Fixeermiddel voor cellen en weefsels |
| PARIS kit | Invitrogen, Carlsbad, CA, USA | AM1921 | Kit voor nucleaire en cytoplasmatische RNA-fractionering |
| PCR-systeem | ABI, CA, USA | ABI PRISM 7300 | Real-time PCR instrument |
| p-p38 primair antilichaam | Affinity Biosciences, OH, USA | AF3455 | Primair antilichaam voor detectie van gefosforyleerd p38 |
| Proteïnase K oplossing | Beyotime, Shanghai, China | ST532 | Reagens voor weefselpermeabilisatie vóór TUNEL-kleuring |
| PVDF membranen | Millipore, MA, USA | ISEQ00010 | Membranen voor proteïne-transfer bij Western blotting |
| QKI-5 primair antilichaam | Abcam, MA, USA | ab126742 | Primair antilichaam voor detectie van QKI-5 |
| RNA-bindingsbuffer | Invitrogen, Carlsbad, CA, USA | 65040D | Buffer voor RNA-proteïne bindingsreacties |
| SDS loading buffer | Beyotime, Shanghai, China | P0286 | Monsterlaadbuffer voor SDS-PAGE |
| Streptavidine magnetische kralen | MedChemExpress, Monmouth Junction, NJ, USA | HY-K0208 | Magnetische kralen voor opvang van biotine-gelabelde RNA-probes |
| TB Green FAST qPCR Kit | Takara, Tokyo, Japan | CN830S | Reagenskit voor kwantitatieve PCR |
| Triton X-100 | Macklin, Shanghai, China | T824275 | Permeabilisatieresagens |
| TRIzol reagens | Invitrogen, Carlsbad, CA, USA | 15596018CN | Reagens voor extractie van totaal RNA |
| TUNEL detectie-oplossing | Beyotime, Shanghai, China | C1086 | Reagens voor detectie van DNA-fragmentatie |
| Xyleen | Macklin, Shanghai, China | X821391 | Reagens voor paraffineverwijdering en weefselklaring |
Referenties
- Bhattacharya I, Sharma SS, Majumdar SS. Etiology of male infertility: an update. Reprod Sci. 2024;31(4):942-965.
- Dong S, et al. Testicular aging, male fertility and beyond. Front Endocrinol (Lausanne). 2022;13:1012119.
- Wang X, et al. Decoding the pathogenesis of spermatogenic failure in cryptorchidism through single-cell transcriptomic profiling. Cell Rep Med. 2024;5(9):101709.
- Stallmeyer B, et al. Inherited defects of piRNA biogenesis cause transposon de-repression, impaired spermatogenesis, and human male infertility. Nat Commun. 2024;15(1):6637.
- Szlachcikowska D, Koszła O, Sołek P, Tabęcka-Łonczyńska A. Non-canonical apoptosis mediates oxaliplatin-induced disruption of spermatogenic cells: implications for male fertility. Chem Biol Interact. 2026;431:112009.
- Chi YN, et al. Geniposide attenuates spermatogenic dysfunction via .inhibition of endoplasmic reticulum stress in male mice. Chem Biol Interact. 2022;366:110144.
- Guo XB, et al. Protective effect of bone marrow mesenchymal stem cell-derived exosomes against the reproductive toxicity of cyclophosphamide is associated with the p38 MAPK/ERK and AKT signaling pathways. Asian J Androl. 2021;23(4):386-391.
- Lamb DJ. Chromosome defects and male factor infertility. Fertil Steril. 2025;123(6):933-942.
- Kathrins M, Niederberger C. Diagnosis and treatment of infertility-related male hormonal dysfunction. Nat Rev Urol. 2016;13(6):309-323.
- Piechka A, et al. Molecular mechanisms of cellular dysfunction in testes from men with non-obstructive azoospermia. Nat Rev Urol. 2024;21(2):67-90.
- Li Z, et al. The role of Cistanches Herba and its ingredients in improving reproductive outcomes: a comprehensive review. Phytomedicine. 2024;129:155681.
- Jiang X, et al. Shenling Baizhu San improves spermatogenic dysfunction in hyperuricemia mice by regulating Sirt3/Nrf2 to inhibit testicular ferroptosis. J Ethnopharmacol. 2025;340:119310.
- Deng W, Sun D, Cai B, Jin B. Yangjing capsule improves oligoasthenozoospermia by promoting nitric oxide production through the PLCγ1/AKT/eNOS pathway. Front Pharmacol. 2023;14:1056091.
- Zhao H, et al. Yangjing Capsule ameliorates spermatogenesis in male mice exposed to cyclophosphamide. Evid Based Complement Alternat Med. 2015;2015:980583.
- Jin B, et al. Yangjing Capsule improves testicular angiogenesis by activating the VEGFA/eNOS signaling pathway. Evid Based Complement Alternat Med. 2020;2020:1957267.
- Guo W, et al. Chlorocholine chloride exposure induced spermatogenic dysfunction via .iron overload caused by AhR/PERK axis-dependent ferritinophagy activation. Ecotoxicol Environ Saf. 2024;274:116193.
- Wang Z, et al. Yangjing Capsule extract promotes proliferation of GC-1 Spg cells. Evid Based Complement Alternat Med. 2014;2014:640857.
- Zhang P, et al. LncRNA-mediated adipogenesis in different adipocytes. Int J Mol Sci. 2022;23(13).
- Núñez-Martínez HN, Recillas-Targa F. Emerging functions of lncRNA loci beyond the transcript itself. Int J Mol Sci. 2022;23(11).
- Herman AB, Tsitsipatis D, Gorospe M. Integrated lncRNA function upon genomic and epigenomic regulation. Mol Cell. 2022;82(12):2252-2266.
- Wang JZ, et al. QKI-5 regulates the alternative splicing of the cytoskeletal gene ADD3 in lung cancer. J Mol Cell Biol. 2021;13(5):347-360.
- Zeng Y, et al. Nickel induces blood-testis barrier damage through ROS-mediated p38 MAPK pathways in mice. Redox Biol. 2023;67:102886.
- Luo D, He Z, Yu C, Guan Q. Role of p38 MAPK signaling in testis development and male fertility. Oxid Med Cell Longev. 2022;2022:6891897.
- Xia C, et al. LncRNA CCAT1 enhances chemoresistance in hepatocellular carcinoma by targeting QKI-5. Sci Rep. 2022;12(1):7826.
- Li K, et al. A long noncoding RNA binding to QKI-5 regulates germ cell apoptosis via .the p38 MAPK signaling pathway. Cell Death Dis. 2019;10(10):699.
- Zhou X, et al. ANKRD49 inhibits etoposide-induced intrinsic apoptosis of GC-1 cells by modulating NF-κB signaling. Mol Cell Biochem. 2019;457(1-2):21-29.
- Fang C, et al. Integrative proteomics and metabolomics approach to identify the key roles of icariin-mediated protective effects against cyclophosphamide-induced spermatogenesis dysfunction in mice. Front Pharmacol. 2022;13:1040544.
- Li K, et al. Adeno-associated-virus-mediated delivery of CRISPR-CasRx induces efficient RNA knockdown in the mouse testis. Theranostics. 2024;14(10):3827-3842.
- Yi H, et al. Retinoic acid mitigates NSC319726-induced spermatogenesis dysfunction through cuproptosis-independent mechanisms. Cell Biol Toxicol. 2024;40(1):26.
- Guo Y, Wang A, Liu X, Li E. Effects of resveratrol on reducing spermatogenic dysfunction caused by high-intensity exercise. Reprod Biol Endocrinol. 2019;17(1):42.
- Beeraka NM, et al. Ginsenoside Rh4 suppresses Notch3 and PI3K/Akt signaling to inhibit the growth and metastasis of gastric cancer cells. J Cancer Biomol Ther. 2025;2(1):145-156.
- Li P, et al. Proteomic analysis of cisplatin-induced spermatogenesis defects in mice. Ann Med. 2026;58(1):2612816.
- Wang Z, et al. Melatonin ameliorates paclitaxel-induced spermatogenesis and fertility defects in mice. J Cell Mol Med. 2022;26(4):1219-1228.
- Abdi M, et al. Cyclophosphamide-induced infertility and the impact of antioxidants. Am J Reprod Immunol. 2024;92(6):e70014.
- Özbilgin MK, Demirören S, Üçöz M, Oztatlici M. Cyclophosphamide suppresses spermatogenesis in the testes of mice through downregulation of miR-34b and miR-34c. Andrologia. 2021;53(7):e14071.
- Poojary KK, et al. Curcumin nanocrystals attenuate cyclophosphamide-induced testicular toxicity in mice. Toxicol Appl Pharmacol. 2021;433:115772.
- Cao J, et al. Single-cell map of human azoospermic testes caused by cyclophosphamide chemotherapy. Sci Data. 2024;11(1):163.
- Dong Y, et al. New insights into polycyclic aromatic hydrocarbons: Phenanthrene targets ribosomes to induce neuronal apoptosis. Aquat. Toxicol. 2026;298:107884.
- Wang Y, et al. Interplay between elemental imbalance-related PI3K/Akt/mTOR-regulated apoptosis and autophagy in arsenic (III)-induced jejunum toxicity of chicken. Environ. Sci. Pollut. Res. Int. 2018;25(19):18662-18672.
- Liu H, et al. Integrating network toxicology, transcriptomics and experimental validation to elucidate the potential mechanisms of fluoride-induced neurotoxicity in zebrafish. Comp. Biochem. Physiol. C Toxicol. Pharmacol. 2026;306:110549.
- Saleh DO, et al. Cyclophosphamide-induced testicular injury: the role of chrysin in mitigating iron overload and ferroptosis. Naunyn Schmiedebergs Arch Pharmacol. 2025;398(5):5475-5489.
- Dong S, et al. Loss of lncRNAs 1700101O22Rik and 1700027A15Rik causes sperm malformation and subfertility. Andrology. 2025;13(5):1223-1235.
- Liu W, et al. A novel meiosis-related lncRNA, Rbakdn, contributes to spermatogenesis by stabilizing Ptbp2. Front Genet. 2021;12:752495.
- Sun TC, et al. LncRNAs induce oxidative stress and spermatogenesis by regulating endoplasmic reticulum genes and pathways. Aging (Albany NY). 2021;13(10):13764-13787.
- Hua R, et al. DNM3OS enhances the apoptosis and senescence of spermatogonia associated with nonobstructive azoospermia by providing miR-214-5p and decreasing E2F2 expression. Anal Cell Pathol (Amst). 2023;2023:1477658.
- Wang S, et al. Quaking 5 suppresses TGF-β-induced epithelial-mesenchymal transition and cell invasion in lung adenocarcinoma. EMBO Rep. 2021;22(6):e52079.
- Chen X, et al. The emerging roles of the RNA-binding protein QKI in cardiovascular development and function. Front Cell Dev Biol. 2021;9:668659.
- Li J, et al. Qiangjing tablets repair blood-testis barrier dysfunction in rats by regulating oxidative stress and the p38 MAPK pathway. BMC Complement Med Ther. 2022;22(1):133.
- Tang Z, et al. MRE11 is essential for the long-term viability of undifferentiated spermatogonia. Cell Prolif. 2024;57(9):e13685.
- Jiao Y, Feng Z, Zhang T, Chen X. Impact of Vitamin D(3) Supplementation on Androgens and Semen Parameters in Infertile Men: A Systematic Review and Meta-Analysis Based on Prospective Randomised Controlled Trials. Arch. Esp. 2025;78(6):772-781.
Toegang beperkt. Log in of start een proefperiode om deze inhoud te bekijken.