Dit protocol beschrijft een knaagdiermodel voor myopia zonder gebruik van brillen of ooglidhechtingen, geïnduceerd door subconjunctivale TGF-β2-injecties, waarbij de NLRP3/IL-1β-MMP2-as wordt geactiveerd om axiale elongatie te veroorzaken, terwijl een gesplitst regime voor biometrische registratie anesthesie-artefacten minimaliseert voor data met een hoge getrouwheid.
Methodenartikel
Vestiging van een TGF-β-geïnduceerd rodentiaal myopia-model middels subconjunctivale injecties
In dit artikel
Samenvatting
Samenvatting
Myopie is een belangrijk wereldwijd vraagstuk voor de volksgezondheid, gekenmerkt door overmatige axiale verlenging en remodellering van de extracellulaire matrix (ECM) van de sclera. Hoewel experimentele modellen essentieel zijn voor het onderzoeken van deze mechanismen, vertonen traditionele optische defocus-methoden bij kleine knaagdieren technische beperkingen. Hier is een standaardiseerbaar farmacologisch myopiemodel vastgesteld en geëvalueerd via herhaalde subconjunctivale injecties van transforming growth factor-beta (TGF-β). Om een gerichte toediening te bereiken, is een chirurgische stabilisatietechniek met twee handen ontwikkeld om het bovenste ooglid om te keren, waardoor een 33-gauge naald de palpebrale conjunctiva kan targeten onder een geringe hoek van 20°–30°. Via in vivo screening bij ratten werd TGF-β2 (500 pg/oog) geïdentificeerd als een prominente drijver van posterieure ooggroei. Vervolgende dosis-respons titratie bij muizen onthulde een omgekeerd U-vormig profiel. In de primaire validatiecohort induceerde de laagste dosis (250 pg/oog) een uitgesproken axiale verlenging (0,197 ± 0,012 mm) en myope refractieve verschuivingen (−1,58 ± 0,63 D). Op moleculair niveau activeerde herhaalde toediening van TGF-β2 de retinaal NOD-like receptor family pyrin domain-containing 3 (NLRP3) / interleukine-1β (IL-1β) inflammasoomcascade en reguleerde het de expressie van matrix metalloproteïnase 2 (MMP2) op in beide soorten. In combinatie met een tweedaags gesplitst regime voor biometrische registratie, dat anesthesie-gerelateerde artefacten minimaliseert, biedt dit protocol een betrouwbaar en schaalbaar platform voor het evalueren van anti-myopie interventies.
Inleiding
Myopie is een belangrijk wereldwijd volksgezondheidsprobleem geworden, waarbij de prevalentie naar verwachting bijna 50% van de wereldbevolking zal treffen tegen 20501,2. De primaire pathologische drijver van progressieve myopie is de overmatige axiale verlenging van het oog, wat leidt tot actieve remodellering van de extracellulaire matrix en weefseldegeneratie, met een structurele verdunning van de achterste oogvliezen tot gevolg3. Deze dynamische veranderingen omvatten zowel structurele remodellering (gekenmerkt door degradatie van de sclera-ECM, collageenverlies en verdunning van de achterste laag) als functionele remodellering (gekenmerkt door verminderde biomechanische stijfheid, veranderde choroidale perfusie en aberrante retino-RPE inflammatoire signalering), die gezamenlijk het levenslange risico op visusbedreigende complicaties en irreversibel visusverlies verhogen, waaronder myope maculopathie, netvliesloslating, glaucoom en premature cataract4,5,6,7. Ondanks de aanzienlijke klinische en sociaaleconomische lasten van deze aandoening, blijven de precieze upstream moleculaire mechanismen die de aberrante ooggroei sturen onvolledig begrepen. Daarom is het ontrafelen van de signaleringspaden die axiale verlenging aansturen en het ontwikkelen van reproduceerbare, gestandaardiseerde diermodellen cruciale stappen naar het identificeren van nieuwe therapeutische targets en het beheersen van de wereldwijde myopie-epidemie.
Hoewel vormdeprivatie-myopie (FDM) en lens-geïnduceerde myopie (LIM) dienen als gouden standaarden voor het onderzoeken van optische defocus en emmetropisatie8,9,10,11, brengt de implementatie van deze optische defocusmodellen bij kleine knaagdieren — in het bijzonder muizen — aanzienlijke technische uitdagingen met zich mee. Het actieve poetsgedrag van muizen leidt regelmatig tot het loslaten van de brillen, wat stressvolle tegenmaatregelen zoals beschermcollars noodzakelijk maakt12. Bovendien veroorzaken mechanische wrijving, het hechten van de oogleden en veranderde micro-omgevingen onder de occluder routinematig secundaire hoornvliescomplicaties, zoals troebeling of hoornvliesulceratie13,14,15. Hoewel FDM en LIM fundamentele paradigma's blijven voor het onderzoeken van visuele defocus, kunnen secundaire complicaties van het oogoppervlak — zoals hoornvliestroebeling, mechanische wrijving of irritatie door ooglidhechtingen — interfereren met optische biometrische metingen15. Deze procedurele artefacten compromitteren de stabiliteit van de traanfilm en de transparantie van het hoornvlies, wat leidt tot hogere uitsluitingspercentages in experimenten en toegenomen meetruis13,16. In tegenstelling hiermee omzeilt farmacologische inductie fysieke occluders, waardoor de helderheid van het hoornvlies behouden blijft en betrouwbare, reproduceerbare optische en ultrasone biometrie wordt gefaciliteerd. Bij myopie wordt overmatige verlenging van het oog gedreven door veranderde remodellering van de extracellulaire matrix (ECM) van de posterieure sclera17, waarbij transforming growth factor-beta (TGF-β) isoformen fungeren als sleutelregulatoren van collageen- en proteoglycaansynthese18,19. Opkomend bewijs suggereert dat TGF-β signalering kan kruisen met laaggradige oculaire ontsteking en matrix metalloproteïnase 2 (MMP2)-gemedieerde matrixdegradatie20, wat mogelijk bijdraagt aan sclera-remodellering en axiale verlenging21,22,23,24. Dit wordt ondersteund door verhoogde spiegels van transforming growth factor-beta 2 (TGF-β2), interleukine-6 (IL-6) en MMP2 gerapporteerd in het kamervocht van myope ogen25,26,27, evenals de activering van de TGF-β / nuclear factor kappa B (NF-κB) / MMP2 as in experimentele modellen20,21. Hoewel deze bevindingen de dynamische intraoculaire moleculaire signalering tijdens myope progressie weerspiegelen, moeten de relatieve anatomische bijdragen aan markers in het kamervocht — of deze nu afkomstig zijn uit lokale anterieure secretie, subconjunctivale depotflux of posterieure vitreuze diffusie — nog volledig worden opgehelderd. Desalniettemin moeten de reikwijdte en inherente beperkingen van dit farmacologische model worden erkend. Omdat subconjunctivale TGF-β toediening optische defocus en visuele verwerkingspaden omzeilt, is dit model het meest geschikt voor het ontleden van downstream biochemische cascades — specifiek TGF-β2 / NOD-like receptor family pyrin domain-containing 3 (NLRP3) / interleukine-1β (IL-1β) / MMP2-gemedieerde sclera ECM-remodellering — en het screenen van kandidaat therapeutische middelen die zich richten op ontstekings- of matrixdegradatiepaden. Omgekeerd is het niet geschikt voor het onderzoeken van upstream visuele signaaltransductie, retina-naar-sclera optische signalering of door omgevingslicht gedreven emmetropisatiemechanismen, waar traditionele FDM- of LIM-modellen onontbeerlijk blijven.
Om deze methodologische tekortkomingen aan te pakken, is een myopie-model opgezet en gevalideerd met behulp van herhaalde subconjunctivale injecties van TGF-β in ratten en muizen, wat een verfijnde aanpak biedt die mechanisch trauma en irritatie van het oogoppervlak minimaliseert. Door de noodzaak van fysieke occluders te omzeilen, biedt dit protocol een precieze controle over de farmacologische dosering en experimentele tijdlijnen, terwijl potentiële gedragsmatige confounders geassocieerd met op het hoofd gemonteerde hardware aanzienlijk worden verminderd. In deze studie werd de potentie van drie recombinante humane TGF-β-isovormen geëvalueerd (die gevalideerde functionele kruisreactiviteit in knaagdierweefsels hebben, ondersteund door sequentieconservatie28) in ratten, en werden de niet-lineaire dosis-respons-kinetiek van TGF-β2 in muizen in kaart gebracht. Belangrijk is dat dit gestandaardiseerde regime efficiënt fenotypische myopie induceerde — gekenmerkt door gelijktijdige axiale elongatie en myope refractieve verschuivingen — en de retinaal NOD-like receptor family pyrin domain-containing 3 (NLRP3) / interleukine-1β (IL-1β) inflammasoom en MMP2-as activeerde. Uiteindelijk biedt dit protocol een levensvatbaar, moleculair gedefinieerd kader voor het targeten van downstream sclera-remodellering, terwijl de specifieke operationele grenzen ervan worden gedetailleerd.
Protocol
Alle dierproeven zijn uitgevoerd in overeenstemming met de richtlijnen en regelingen van de Institutional Animal Care and Use Committee (IACUC) van de China Medical University (CMU). Alle procedures waren conform de verklaring van de Association for Research in Vision and Ophthalmology (ARVO) voor het gebruik van dieren in oogheelkundig onderzoek en visueel onderzoek. Volledige goedkeuring van de CMU-IACUC is verkregen voorafgaand aan de start van alle experimenten. Dieren zijn aan het einde van het experiment geëuthanaseerd in strikte overeenstemming met de richtlijnen van de Institutional Animal Care and Use Committee (IACUC) van de China Medical University (CMU) en de lokale regelgeving voor dierenwelzijn.
1. Dieren en ethische goedkeuring
- Verkrijg mannelijke Brown Norway (BN) ratten (3–4 weken oud, 60–80 g) en mannelijke C57BL/6 (B6) muizen (3–4 weken oud, 15–20 g) van een geschikte leverancier van laboratoriumdieren.
- Huisvest alle dieren in een gecontroleerde omgeving (12 u licht/donker-cyclus, 22 °C ± 2 °C, 50% ± 10% relatieve vochtigheid) met ad libitum toegang tot standaardvoer en water.
- Houd rekening met een acclimatisatieperiode van minimaal 3 dagen voordat er enige experimentele procedure wordt gestart.
- Wijs de ratten of muizen willekeurig toe aan behandelingsgroepen: een vehicle-controlegroep en een TGF-β2-injectiegroep. Gebruik een minimum van N = 5 dieren per cohort om voldoende statistische kracht te garanderen.
OPMERKING: Er is gebruikgemaakt van een between-subjects design. Beide ogen van een individueel dier ontvingen identieke behandelingen (of bilaterale vehicle-controle [1–2 µL BSS] of bilaterale actieve rhTGF-β2).- Meet de bilaterale oculaire parameters (axiale lengte en refractiefout) voor elk dier.
OPMERKING: Zorg dat er schriftelijke goedkeuring is van de CMU-IACUC en dat al het personeel dat de procedures uitvoert, adequaat is getraind en gecertificeerd.
- Meet de bilaterale oculaire parameters (axiale lengte en refractiefout) voor elk dier.
2. Bereiding van TGF-β2 oplossing
OPMERKING: Voer alle reconstitutie- en verdunningsstappen uit in een gecertificeerde biologische veiligheidskast met strikte aseptische technieken.
- Reconstitueer gelyofiliseerd recombinant humaan TGF-β2 in steriel 50% glycerol met 0,1% bovien serumalbumine (BSA) om een voorraadoplossing van 100 µg/mL te bereiden.
- Bereid werkoplossingen door seriële verdunningen van de voorraadoplossing uit te voeren in steriele Balanced Salt Solution (BSS).
- Voor ratcohorten (dosis van 500 pg), verdun de voorraadoplossing tot een eindconcentratie van 250 ng/mL (250 pg/µL) voor een injectievolume van 2 µL per oog.
- Voor dosis-responscohorten bij muizen, bereid drie onafhankelijke werkoplossingen voor bij concentraties van 250 ng/mL, 375 ng/mL en 500 ng/mL (250, 375 en 500 pg/µL) voor een injectievolume van 1 µL per oog.
- Bereid eenmalige aliquots van 15–20 µL in steriele microcentrifugebuisjes, vries deze direct in met vloeibare stikstof en bewaar ze bij -20 °C. Ontdooi de aliquots op ijs vlak voor gebruik.
WAARSCHUWING: Vloeibare stikstof kan ernstige koudebrand veroorzaken en vormt een verstikkingsgevaar. Draag geschikte cryogene PBM en hanteer de stof in een goed geventileerde ruimte in overeenstemming met de institutionele veiligheidsprocedures. - Bereid parallel daaraan de vehikelcontrole-oplossing met steriele BSS aangevuld met een equivalente matrix van 50% glycerol en 0,1% BSA.
3. Procedure voor subconjunctivale injectie
- Plaats de dieren in een inductiekamer met 3–4% isofluraan voor anesthesie-inductie. Verplaats het dier vervolgens naar een neusmasker dat 1,5–2% isofluraan afgeeft voor het in stand houden van de anesthesie.
WAARSCHUWING: Isofluraan is een vluchtig anestheticum. Gebruik een geschikt afzuigsysteem en hanteer het in overeenstemming met de institutionele procedures voor arbeidsgezondheid en veiligheid. - Verifieer een adequate diepte van de anesthesie door te bevestigen dat de terugtrekreflex bij een kneepje in de teen afwezig is.
- Positioneer het dier in buikligging onder een glasvezel-spotlight. Pak het bovenste ooglid voorzichtig vast, til het op en everteer het licht met behulp van fijnpuntige micropincetten om de palpebrale conjunctiva en de conjunctivale fornix volledig bloot te leggen (Figuur 1B).
- Bevocht een glazen microspuit van 10 µL en een naald van 33-gauge 2–3 keer voor met de werkopleossing om de dode ruimte te elimineren. Laad het doelvolume (2 µL voor ratten of 1 µL voor muizen) en verwijder alle microbelletjes.
WAARSCHUWING: Hanteer naalden en andere scherpe voorwerpen voorzichtig en gooi ze weg in een goedgekeurde container voor scherpe voorwerpen in overeenstemming met de institutionele regelgeving. - Oriënteer de 33-G naald met de schuin geslepen zijde naar boven (bevel-up) en richt op de aangewezen injectieplaats op het blootgelegde palpebrale conjunctivale oppervlak (Figuur 1B,C).
- Steek de naaldpunt door het conjunctivale epitheel onder een flauwe hoek van 20°–30° (Figuur 1C).
- Voer de naald voorzichtig door de nauwe submucosale ruimte voorbij de conjunctivale fornix in het palpebrale subconjunctivale domein (Figuur 1C).
KRITIEKE STAP (te vermijden structuren): Vermijd strikt het penetreren van de onderliggende meibomklieren of het per ongeluk perforeren van dieper gelegen oculaire structuren. Bevestig de juiste oppervlakkige plaatsing visueel onder de spotlight door ervoor te zorgen dat de naaldpunt gedurende de gehele voortgang zichtbaar blijft onder het translucente conjunctivale oppervlak. - Injecteer de oplossing langzaam gedurende 5–10 s. Houd de naald nog 5 s op zijn plaats voordat u deze langzaam terugtrekt om terugstroming van vloeistof te voorkomen.
OPMERKING: Een correcte subconjunctivale toediening wordt bevestigd door onmiddellijke gelokaliseerde elevatie en bleking van de conjunctiva (vorming van een bleb).- Indien er geen bleb wordt gevormd of als er aanzienlijke lekkage optreedt, voer dan een enkele herinjectie uit in de inferieure palpebrale conjunctivale ruimte en noteer de afwijking in het experimentele logboek.
OPMERKING: Beperk herinjecties strikt tot één poging per oog per sessie; sluit dieren met aanhoudende toedieningsfouten uit van de longitudinale analyse.
- Indien er geen bleb wordt gevormd of als er aanzienlijke lekkage optreedt, voer dan een enkele herinjectie uit in de inferieure palpebrale conjunctivale ruimte en noteer de afwijking in het experimentele logboek.
- Saniteer de holte van de microspuit tussen injecties bij individuele dieren binnen dezelfde groep door 3 keer te spoelen met steriele 70% ethanol, gevolgd door 5 keer met steriele zoutoplossing.
- Inspecteer de 33-G naaldpunt onder vergroting om de 3–5 injecties en vervang de naald onmiddellijk als de punt bot wordt of verbuigt.
- Injecteer eerst alle vehicle-controledieren, voordat de behandelingscohorten worden gehanteerd of geïnjecteerd, om het risico op farmacologische kruiscontaminatie te elimineren. Herhaal de saniteercyclus van de spuit vóór de overgang naar de behandelingsgroepen.
- Spoel de spuitcilinder en zuiger na elke experimentsessie met een speciale reinigingsoplossing voor microspuiten, vervolgens met ultrapuur water en absolute ethanol, en bewaar ze droog.
- Herhaal de subconjunctivale injecties één keer per week gedurende 3 opeenvolgende weken (Dagen 0, 7 en 14). Voer longitudinale biometrische beoordelingen uit bij de baseline (Dagen −1 en 0) en het eindpunt (Dagen 20 en 21), zoals gedetailleerd in Sectie 4.
- Plaats het dier na de injectie in een warme herstelkooi bekleed met papieren handdoeken. Monitor het dier continu totdat volledige sternale recumbentie en normale ambulante activiteit zijn herwonnen.
- Inspecteer de ogen na het herstel onder een stereomicroscoop om intraoculaire bloedingen, hoornvliesopaciteit of acuut mechanisch trauma uit te sluiten. Monitor de dieren dagelijks op tekenen van distress of gelokaliseerde infectie.
4. Methoden voor modelvalidatie
- Beoordeling van de okulair refractiefout
- Plaats de knaagdieren op een thermostaatgestuurd verwarmingskussen om de fysiologische lichaamstemperatuur te handhaven en anesthetische cataracten te voorkomen. Houd de dieren onder lichte isofluraan anesthesie (1–1.5%) via een neusmasker om een consistente anesthesiediepte te waarborgen.
- Instilleer 1 druppel Mydrin-P (0.5% tropicamide en 0.5% fenylefrinehydrochloride) in elk oog 10–15 min vóór de meting om volledige cycloplegie en pupilverwijding te induceren.
- Positioneer het dier in buikligging onder zwak, indirect omgevingslicht. Breng steriele BSS continu aan tot op het moment van de optische acquisitie om de transparantie van het hoornvlies te behouden.
- Meet de okulair refractie met behulp van een geautomatiseerde infrarood-fotorefractometer binnen een strikt venster van 5–10 min na de inductie van de anesthesie. Trek bij BN-ratten de oogleden voorzichtig handmatig terug om de verwijde pupil tijdens de acquisitie volledig bloot te leggen.
- Verkrijg drie onafhankelijke optische metingen per oog en bereken het gemiddelde van de waarden om de baseline of de endpoint refractiefout te bepalen.
CRUCIALE STAP (Timing & Volgorde): Voer de fotorefractie uit op Dag 1 van de evaluatiesequentie (Dag –1 voor baseline; Dag 20 voor endpoint) onder zwak licht voorafgaand aan alle contactprocedures. Het uitvoeren van fotorefractie na contact-ultrasonografie of het aanbrengen van akoestische gel verstoort de hoornvliesoptiek ernstig, verstrooit infrarood licht en maakt geautomatiseerde refractiemetingen ongeldig.
- Meting van de axiale lengte via hoogfrequente B-scan ultrasonografie
- Evalueer op de volgende dag (Dag 0 voor baseline of Dag 21 voor endpoint) de okulair axiale lengte onder lichte isofluraan anesthesie (1–1.5%) met behulp van een handheld 16 MHz lineaire echoprobe, gekalibreerd op de akoestische snelheid van knaagdierweefsel (1532–1550 m/s).
- Voor B6-muizen (directe cornea-interface): Breng een basisbeschermende laag Ginpol carbomeergel (0.2%) direct aan op het hoornvlies, gevolgd door een laag standaard akoestische gel.
OPMERKING: Zorg ervoor dat de gellaag het hoornvliesoppervlak volledig bedekt zonder ingesloten luchtbellen te introduceren, aangezien deze akoestische attenuatie veroorzaken. - Voor BN-ratten (transpalpebrale interface): Positioneer het dier met gesloten oogleden, breng echogel aan op het oppervlak van het buitenste ooglid en verkrijg de metingen transpalpebraal.
OPMERKING: Transpalpebrale meting elimineert direct contact met het hoornvlies, waardoor het risico op cornea-abrasie bij grotere ogen van knaagdieren aanzienlijk wordt verminderd.
- Voor B6-muizen (directe cornea-interface): Breng een basisbeschermende laag Ginpol carbomeergel (0.2%) direct aan op het hoornvlies, gevolgd door een laag standaard akoestische gel.
- Richten de echoprobe en meet de axiale lengte langs de centrale optische as van de anterieure okulair interface tot de posterieure sclera-echowand.
- Verkrijg tien onafhankelijke B-scan replica-traces per oog en bereken de gemiddelde axiale lengte.
- Spoel resterende akoestische gel onmiddellijk na de acquisitie voorzichtig uit het oog met steriele BSS om post-procedurele irritatie van het hoornvlies te voorkomen.
CRUCIALE STAP (nul-druk aanraking): Plaats de echoprobe op de gel-interface met een extreem lichte aanraking zonder druk. Elke neerwaartse fysieke druk op de apex van het hoornvlies comprimeert de diepte van de voorste kamer kunstmatig en introduceert een foutieve verkorting van de axiale lengte. - Noteer de gemiddelde axiale lengte en de refractiefoutmetingen voor verdere analyse.
- Evalueer op de volgende dag (Dag 0 voor baseline of Dag 21 voor endpoint) de okulair axiale lengte onder lichte isofluraan anesthesie (1–1.5%) met behulp van een handheld 16 MHz lineaire echoprobe, gekalibreerd op de akoestische snelheid van knaagdierweefsel (1532–1550 m/s).
Resultaten
Vestiging en anatomische validatie van het subconjunctivale injectiemodel
Om technische variabiliteit geassocieerd met optisch goggling of het hechten van de oogleden aan te pakken, werd de subconjunctivale ruimte tussen de palpebrale en bulbaire conjunctiva gevalideerd als een gericht gelokaliseerd drugdepot (Figuur 1A). Anatomische toegang via de superieure fornix zorgde voor een consistente blootstelling van de doellocatie terwijl de integriteit van hetst oogoppervlak behouden bleef (Figuur 1B). Een succesvolle vestiging van het model werd bevestigd aan de hand van specifieke operationele en biometrische criteria, waaronder de onmiddellijke transilluminatieverificatie van een gelokaliseerde, vloeistofgevulde submucosale bleb (chemosis) over de doelruimte van de palpebrale subconjunctiva zonder sclera-perforatie, weefselhemorragie of letsel aan de meibomklieren (Figuur 1C), evenals longitudinale biometrische verificatie van gelijktijdige axiale elongatie (Δ AL > 0.15 mm bij muizen; >0.40 mm bij ratten) vergezeld gaand van een myope refractieverschuiving (Δ Refractie < −1.0 D) op dag 21 ten opzichte van vehicle-behandelde controles. Omgekeerd werden onsuccesvolle of suboptimale uitkomsten geïdentificeerd aan de hand van specifieke technische en fysiologische faalmodi. Technisch falen — zoals premature vloeistofreflux bij het terugtrekken van de naald of onbedoelde diepe penetratie van het ooglid- of orbitale weefsel — resulteerde in minimale of afwezige bleb-vorming, wat leidde tot onvoldoende farmacologische retentie en het uitblijven van myope verschuivingen; dieren met aanhoudende lekkage werden gedocumenteerd en uitgesloten volgens Protocolstap 3.8.1. Daarnaast veroorzaakten complicaties aan het oogoppervlak door foutieve diepe plaatsing van de naald of overmatige mechanische tractie gelokaliseerde subconjunctivale hemorragie of corneaal trauma, wat storende inflammatoire responsen introduceerde. Suboptimale fenotypische uitkomsten werden ook waargenomen tijdens dosis-responsevaluaties, waarbij toediening van supradrempelconcentraties (bijv. 500 pg/oog bij muizen) een gedempte U-vormige respons opleverde met verminderde axiale elongatie, wat de fysiologische noodzaak voor strikte dosisoptimalisatie onderstreept. Geverifieerde gelokaliseerde drugretentie onder deze gestandaardiseerde criteria waarborgde een hoog-getrouwe weefseltargeting voor downstream biometrische en moleculaire analyses.
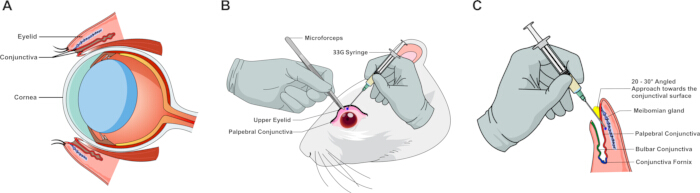
Figuur 1: Anatomische ijkpunten en schematische illustratie van de procedure voor subconjunctivale injectie bij knaagdieren. (A) Sagittale dwarsdoorsnede van het oog van een knaagdier met weergave van de belangrijkste anatomische ijkpunten, waaronder het ooglid, het hoornvlies, de conjunctivale zak en de beoogde subconjunctivale ruimte. (B) Chirurgische demonstratie van weefselstabilisatie en blootstelling van de palpebrale conjunctiva met behulp van micro-pincetten; de blauwe stip geeft de beoogde insteekplaats van de naald aan voor micro-injectie met een 33-gauge spuit. (C) Schematische weergave bij hoge vergroting die de oriëntatie van de naald en het traject van de insertie illustreert ten opzichte van het oppervlak van de palpebrale conjunctiva, de conjunctivale fornix en de onderliggende oculaire structuren. Klik hier om een grotere versie van deze figuur te bekijken.
Screening van TGF-β-isovormen bij ratten en dosis-respons titratie van TGF-β2 bij muizen voor axiale elongatie
Experimenten werden uitgevoerd in opeenvolgende, onafhankelijke experimentele cohorten, bestaande uit de dosis-screeningcohorten (Figuur 2) en primaire validatiecohorten (Figuur 3). Bilaterale parameters werden over de cohorten heen gemeten, waarbij individuele dieren (N) als de primaire biologische replica werden aangemerkt. Inter-oculaire afhankelijkheden (OD versus OS binnen hetzelfde dier) werden waar passend meegenomen met behulp van twee-weg repeated-measures ANOVA of mixed-effects modellen. Continue gegevens worden gepresenteerd als gemiddelde ± SD. Verschillen tussen controle- en behandelingsgroepen werden geëvalueerd met behulp van tweezijdige Student's t-testen, één-weg ANOVA of twee-weg repeated-measures ANOVA, waar passend. Een p-waarde < 0,05 werd beschouwd als statistisch significant.
Om de meest potente isovorm van de transformerende groeifactor-β (TGF-β) te bepalen en een optimaal doseringsschema vast te stellen voor het induceren van axiale verlenging, werden de effecten van herhaalde subconjunctivale injecties in cohorten ratten en muizen geëvalueerd vanaf de nulmeting (dag 0) tot dag 21 (Figuur 2). Biometrische metingen werden uitgevoerd met een verdeeld schema over twee dagen om artefacten door anesthesie te voorkomen.
Drie recombinante humane TGF-β-isovormen (TGF-β1, TGF-β2 en TGF-β3) werden eerst gescreend in de ratcohort bij een gestandaardiseerde concentratie van 500 pg/oog (Figuur 2A). Eenweg-ANOVA, gevolgd door post hoc meervoudige vergelijkingen, onthulde dat alle drie de isovormen de posterieure ooggroei significant stimuleerden in vergelijking met de vehikel-behandelde controlegroep over de periode van 21 dagen. Hoewel zowel TGF-β1 (0,444 ± 0,042 mm) als TGF-β3 (0,454 ± 0,049 mm) significante axiale verlenging bevorderden (p < 0,05 en p < 0,01 ten opzichte van de controle van 0,328 ± 0,071 mm, respectievelijk), induceerde TGF-β2 de grootste toename van de axiale lengte (0,486 ± 0,074 mm) en vertoonde deze de hoogste statistische significantie (p < 0,001), waardoor het werd vastgesteld als de meest effectieve induceerder van het myope fenotype.
Op basis van de screeningresultaten bij ratten werd een dosis-respons titratie van TGF-β2 uitgevoerd in de muizencohort, waarbij drie concentraties werden getest: 250, 375 en 500 pg/oog (Figuur 2B). Subconjunctivale toediening van TGF-β2 resulteerde in een omgekeerd U-vormig dosis-respons profiel. De laagste dosis (250 pg/oog) leidde tot de meest significante versnelling van de axiale elongatie vergeleken met de vehicle-controles (0,177 ± 0,038 mm tegenover 0,044 ± 0,011 mm; p < 0,0001). Bij hogere doses (375 en 500 pg/oog) nam de omvang van de verandering in axiale lengte progressief af, hoewel deze significant hoger bleef dan bij de controles ( respectievelijk 0,123 ± 0,029 mm; p < 0,001 en 0,095 ± 0,024 mm; p < 0,01).
Samen stellen deze gegevens een wekelijks subconjunctivaal regime van 500 pg/oog voor ratten en 250 pg/oog voor muizen vast als de optimale parameters voor opeenvolgende structurele en moleculaire onderzoeken.
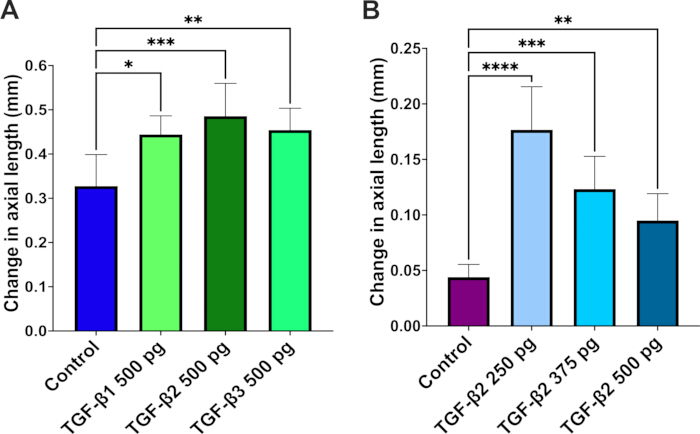
Figuur 2: Dosisselectie-screening van transforming growth factor-β (TGF-β) isoformen en concentraties op de axiale lengte in ratten- en muizenogen. (A) Verandering in de axiale lengte bij ratten (initiële screeningscohort), berekend als het verschil tussen de baseline (Dag 0, vóór de eerste injectie) en het uiteindelijke eindpunt (Dag 21), na drie opeenvolgende subconjunctivale injecties van TGF-β1, TGF-β2 of TGF-β3 (500 pg/oog toegediend op Dag 0, 7 en 14), vergeleken met vehicle-behandelde controles. (B) Verandering in de axiale lengte bij muizen (dosisscreeningscohort), berekend als het verschil tussen de baseline (Dag 0) en Dag 21, na drie opeenvolgende subconjunctivale injecties van TGF-β2 in drie verschillende concentraties (250, 375 of 500 pg/oog toegediend op Dag 0, 7 en 14), vergeleken met vehicle-behandelde controles. Gegevens worden weergegeven als gemiddelde ± SD (N = 5 dieren/groep, wat overeenkomt met 10 ogen per groep). Statistische significantie werd geëvalueerd via eenweg-ANOVA gevolgd door post hoc meervoudige vergelijkingen; *p < 0,05, **p < 0,01, ***p < 0,001, ****p < 0,0001 ten opzichte van de vehicle-controlegroep. Klik hier om een grotere versie van deze figuur te bekijken.
Herhaalde subconjunctivale TGF-β2-injecties induceren okulair axiale verlenging en myope verschuivingen bij ratten en muizen
Om de biometrische impact van repetitieve subconjunctivale toediening van TGF-β2 (3 wekelijkse injecties) te evalueren, werden longitudinale veranderingen in de okulair axiale lengte en de refractiefout vanaf de baseline tot week 3 in zowel rat- als muismodellen (Figuur 3) gemonitord. Het twee-daagse gesplitste protocol (refractiestatus vastgelegd op dag 20, gevolgd door B-scan ultrasonografie op dag 21) minimaliseerde potentiële anesthesie-artefacten en okulair stress. Beide soorten vertoonden fenotypische verschuivingen die consistent waren met de ontwikkeling van experimentele myopie na dit multi-dose regime.
In de rattencohort vertoonden dieren die herhaalde subconjunctivale injecties van 500 pg/oog TGF-β2 kregen, een significant grotere toename in axiale lengte over de periode van 21 dagen vergeleken met de voertuigcontroles (0,466 ± 0,045 mm tegenover 0,388 ± 0,032 mm; p < 0,01; Figuur 3A). Deze verlenging ging gepaard met een significante myope verschuiving in de refractiefout (p < 0,05; Figuur 3B). Terwijl de voertuigcontrole-ogen een verwachte lichte hyperope drift vertoonden (+0,31 ± 0,93 D), gingen de met TGF-β2 behandelde ogen over in een myope refractietoestand (−1,38 ± 0,91 D).
In overeenstemming met de gegevens van de ratten vertoonden muizen die waren behandeld met 250 pg/oog TGF-β2 ook duidelijke structurele en refractieve veranderingen. De axiale verlenging was significant toegenomen bij de met TGF-β2 behandelde muizen in vergelijking met de voertuigcontroles (0,197 ± 0,012 mm tegenover 0,110 ± 0,014 mm; p < 0,0001; Figuur 3C). Bovendien leidde deze structurele verlenging tot een significante myope verschuiving (p < 0,05; Figuur 3D), waarbij de natuurlijke hyperope refractie waargenomen bij controlemuizen (+2,25 ± 1,77 D) effectief werd omgezet in een myoop profiel (−1,58 ± 0,63 D).
Om de symmetrie van de inter-oculaire respons te verifiëren en te bevestigen dat het samenvoegen van bilaterale oculaire metingen geen statistische bias introduceert, werden de dynamieken van de axiale elongatie afzonderlijk geëvalueerd voor het linker- (OS, n = 5) en rechteroog (OD, n = 5) binnen elke groep (Supplementary Figure 1). Zowel bij ratten (Supplementary Figure 1A) als bij muizen (Supplementary Figure 1B) werd geen statistisch significant verschil waargenomen tussen OS- en OD-ogen binnen de vehicle-controlegroep of de TGF-β2-behandelde cohorten, wat symmetrische responsdynamieken tussen de ogen bevestigt. Bovendien vertoonden zowel OS- als OD-ogen bij TGF-β2-behandelde dieren een consistente en robuuste axiale elongatie ten opzichte van hun overeenkomstige vehicle-controles (p < 0,05 voor ratten; p < 0,0001 voor muizen), wat de validiteit ondersteunt van het meerekenen van bilaterale metingen in de primaire biometrische analyse.
Gezamenlijk tonen deze bevindingen aan dat herhaalde subconjunctivale toediening van TGF-β2 effectief achterste ooggroei en een overeenkomstige myope refractieverschuiving induceert in beide knaagdiermodellen (Figuur 3 en Aanvullende Figuur 1).
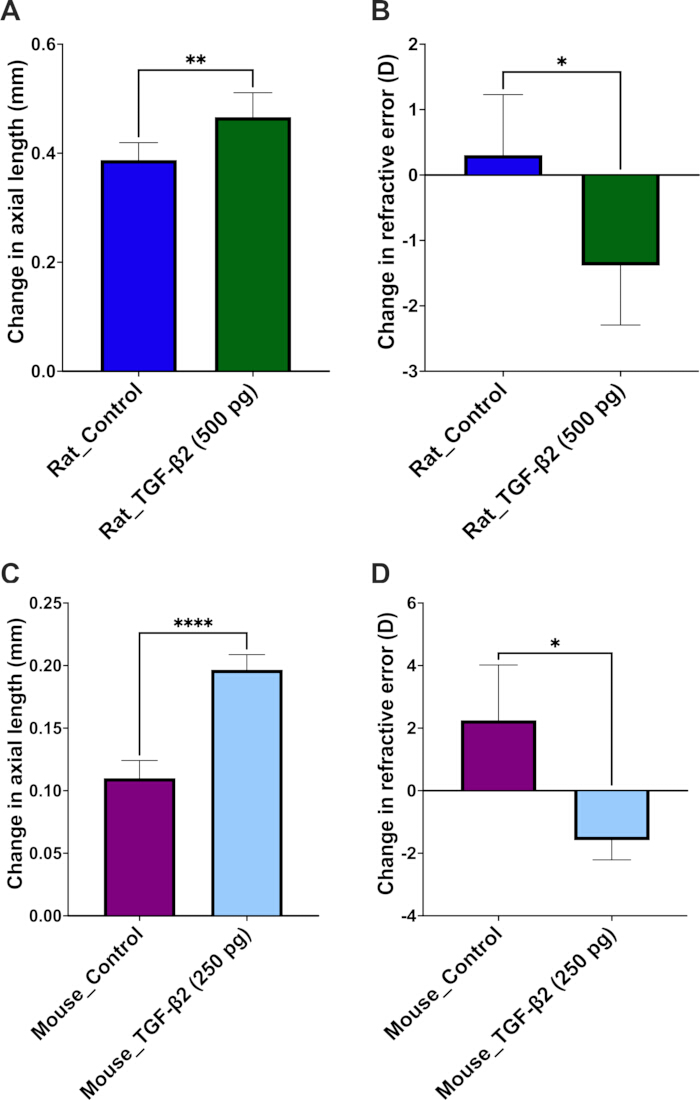
Figuur 3: Primaire validatie van de effecten van TGF-β2 op axiale elongatie en refractiefout in onafhankelijke ratten- en muizencohorten. (A) Verandering in axiale lengte bij ratten, berekend als het verschil tussen de baseline en het eindpunt in week 3 in ogen die subconjunctivaal TGF-β2 (500 pg/oog sequentieel toegedient op dag 0, 7 en 14) of een vehicle-controle ontvingen. (B) Verandering in refractiefout in dezelfde rattenogen, waarbij een significante myope shift wordt getoond in de TGF-β2-behandelde groep vergeleken met de vehicle-controlegroep. (C) Verandering in axiale lengte bij muizen (onafhankelijk primair validatiecohort), berekend als het verschil tussen de baseline en het eindpunt in week 3 in ogen die subconjunctivaal TGF-β2 (250 pg/oog toegedient op dag 0, 7 en 14) of een vehicle-controle ontvingen. (D) Verandering in refractiefout in dezelfde muizenogen, waarbij een overeenkomstige negatieve dioptrische shift zichtbaar is bij optimale TGF-β2-inductie. Gegevens zijn weergegeven als gemiddelde ± SD (N = 5 dieren/groep, wat overeenkomt met 10 ogen per groep). Statistische significantie is strikt geëvalueerd met ongepaarde tweezijdige t-toetsen; *p < 0.05, **p < 0.01, ****p < 0.0001 ten opzichte van de overeenkomstige vehicle-controlegroep. Klik hier om een grotere versie van deze figuur te bekijken.
Subconjunctivale toediening van TGF-β2 reguleert de expressie van scleraal MMP2 opwaarts tijdens de progressie van experimentele myopie
Om de stroomafwaartse weefselremodellering langs de retino-sclerale as te beoordelen, werd de expressie van matrixmetalloproteïnase 2 (MMP2) in sclerale dwarsdoorsneden na subconjunctivale toediening van TGF-β2 (Figuur 4) geëvalueerd. Kwantitatieve immunofluorescentieanalyse van posterieure oogsecties in het ratmodel toonde een significante upregulatie van MMP2-proteineniveaus aan binnen het sclerale stroma van TGF-β2-behandelde ogen (500 pg/oog) op dag 21 vergeleken met vehicle-controles (p < 0,0001; Figuur 4A, B).
Een prominent MMP2-fluorescentiesignaal was gelokaliseerd in de gehele sclera-matrix onder het retinaal pigmentepitheel (RPE) en de choroïdale lagen, wat wijst op gelokaliseerde MMP2-geassocieerde remodellering van de extracellulaire matrix (ECM) in het buitenste oogvlies tijdens de ontwikkeling van experimentele myopie. Deze structurele veranderingen in de sclera stimuleerden verder onderzoek naar stroomopwaartse moleculaire veranderingen in het aangrenzende netvlies.
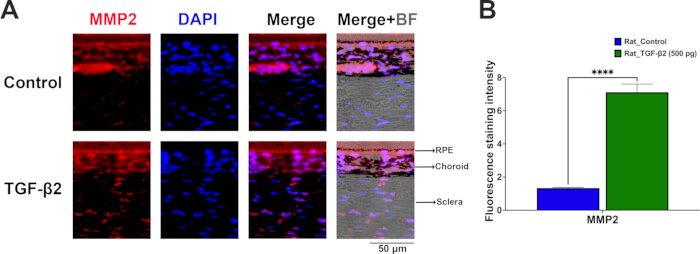
Figuur 4: Subconjunctivale toediening van TGF-β2 reguleert de expressie van MMP2 in de sclera van de rat opwaarts. (A) Representatieve immunofluorescentiebeelden van posterieure oogdoorsneden die de scleraal MMP2-expressie (rood) tonen in vehicle-controle en TGF-β2-behandelde (500 pg/oog) ratten op dag 21. Celkernen werden tegengekleurd met DAPI (blauw). Brightfield-overlay (Merge+BF) bakent de anatomische grenzen van het RPE, het choroidea en de sclera af. Schaalbalk = 50 µm. (B) Kwantitatieve analyse van de fluorescentiekleuringsintensiteit die een significante toename van de scleraal MMP2-expressie bevestigt in TGF-β2-behandelde rattenogen. Gegevens worden weergegeven als gemiddelde ± SD (N = 3 onafhankelijke biologische herhalingen per groep, 1 oog per dier). Statistische significantie werd geëvalueerd met een ongepaarde tweezijdige t-toets; ****p < 0.0001 ten opzichte van de vehicle-controlegroep. Afkortingen: RPE, retinaal pigmentepitheel; BF, brightfield. Klik hier om een grotere versie van deze figuur te bekijken.
TGF-β2-inductie reguleert MMP2 en inflammasoom-gerelateerde eiwitten in de retina van zowel ratten als muizen opwaarts
Om de downstream moleculaire veranderingen te onderzoeken die worden veroorzaakt door repetitieve subconjunctivale injecties, werd immunofluorescentiekleuring uitgevoerd op posterieure oogsecties van zowel Brown Norway-ratten als C57BL/6-muizen op dag 21 (Figuur 5A–D). Alle evaluaties werden uitgevoerd op sagittale retinasecties die strikt waren uitgelijnd op de optische zenuwkop om een consistente ruimtelijke oriëntatie te waarborgen. Kwantitatieve analyse toonde aan dat wekelijkse toediening van TGF-β2 de expressieprofielen van specifieke eiwitten over de retinalaminae in beide soorten significant veranderde in vergelijking met de vehikelcontroles (Figuur 5E,F).
In het ratmodel leidde de toediening van 500 pg/oog TGF-β2 tot een significante toename van de TGF-β2-spiegels in het netvlies (p < 0,0001; Figuur 5A,E). Deze upregulatie ging gepaard met een verhoogde expressie van matrix metalloproteïnase 2 (MMP2) (p < 0,0001; Figuur 5B,E), wat duidt op actieve remodellering van de extracellulaire matrix. Bovendien activeerde de TGF-β2-behandeling de inflammatoire cascade in het netvlies, wat werd aangetoond door de upregulatie van de inflammasoomsensor NLRP3 (p < 0,0001; Figuur 5C,E) en het pro-inflammatoire cytokine IL-1β (p < 0,0001; Figuur 5D,E).
Op dezelfde wijze vertoonden muizen die behandeld waren met 250 pg/oog TGF-β2 consistente stijgende trends in deze biomarkers (Figuur 5F). De expressies van retinale TGF-β2 (p < 0,01; Figuur 5A,F) en MMP2 (p < 0,001; Figuur 5B,F) waren significant verhoogd. De inflammasoom-route was even tevoren geactiveerd in de retina van de muis, met significante toenames in de expressie van NLRP3 (p < 0,01; Figuur 5C,F) en een uitgesproken opregulatie van IL-1β (p < 0,0001; Figuur 5D,F) vergeleken met bijna ondetecteerbare baseliniveaus in de controlegroep.
Samen tonen deze bevindingen aan dat subconjunctivale toediening van TGF-β2 de MMP2-gemedieerde matrix-remodellering in het netvlies bevordert en de NLRP3/IL-1β-inflammasoomroute activeert in het posterieure netvlies van beide knaagdiersoorten.
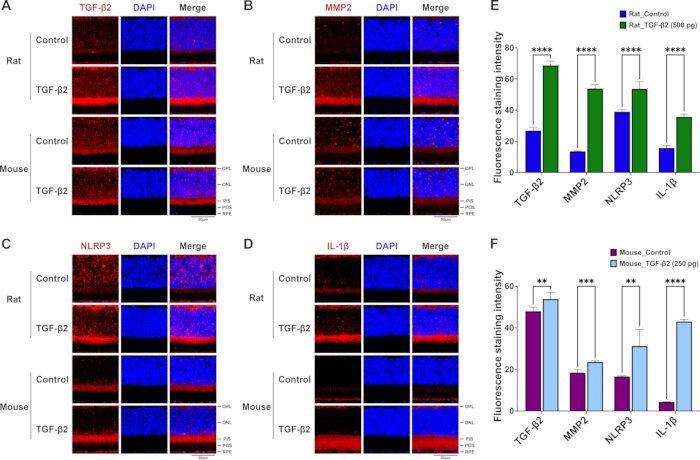
Figuur 5: Herhaalde subconjunctivale toediening van TGF-β2 reguleert de expressie van MMP2 en inflammasoom-gerelateerde eiwitten op in de posterieure retina van ratten en muizen. (A–D) Representatieve immunofluorescentiebeelden van sagittale secties van de retina van controlegroepen en TGF-β2-behandelde groepen bij ratten (bovenste panelen) en muizen (onderste panelen), gekleurd voor (A) TGF-β2, (B) MMP2, (C) NLRP3 en (D) IL-1β (rood), met celkernen tegengekleurd met DAPI (blauw). Schaalbalk = 50 µm. De representatieve velden tonen selectief de veranderingen binnen de buitenste retinalagen, waarbij een prominente eiwitexpressie wordt benadrukt die zich uitstrekt van de buitenste plexiforme laag (OPL) tot aan het basale retinaal pigmentepitheel (RPE)-complex. (E) Kwantificering van de fluorescentie-kleuringsintensiteit voor TGF-β2, MMP2, NLRP3 en IL-1β in rattenretina's van de controlegroep en de TGF-β2-behandelde groep (500 pg). (F) Kwantificering van de fluorescentie-kleuringsintensiteit voor TGF-β2, MMP2, NLRP3 en IL-1β in muizenretina's van de controlegroep en de TGF-β2-behandelde groep (250 pg). Gegevens worden weergegeven als gemiddelde ± SD (N = 3 onafhankelijke biologische replica's per groep, 1 oog per dier). Statistische significantie werd strikt geëvalueerd met ongepaarde twee-zijdig t-toetsen; **p < 0,01, ***p < 0,001, ****p < 0,0001 ten opzichte van de respectievelijke vehicle-controlegroep. Afkortingen: OPL, outer plexiform layer; ONL, outer nuclear layer; PIS, photoreceptor inner segments; POS, photoreceptor outer segments; RPE, retinaal pigmentepitheel. Klik hier om een grotere versie van deze figuur te bekijken.
Aanvullende figuur 1: Interoculaire symmetrie en evaluatie van bilaterale datapooling na subconjunctivale TGF-β2-toediening. (A) Vergelijkende analyse van veranderingen in de axiale lengte tussen linkerogen (OS, n = 5) en rechterogen (OD, n = 5) bij ratten die een vehicle-controle of bilaterale subconjunctivale TGF-β2 (500 pg/oog) ontvingen. (B) Overeenkomstige interoculaire vergelijking tussen OS (n = 5) en OD (n = 5) ogen bij muizen onder vehicle-controle of bilaterale TGF-β2-behandeling (250 pg/oog). Statistische toetsing bevestigde dat er geen significant verschil was tussen OS- en OD-ogen binnen dezelfde behandelcohort, wat valideert dat bilaterale datapooling geen interoculaire bias introduceert. Tegelijkertijd vertoonden zowel OS- als OD-ogen in TGF-β2-behandelde dieren een significante axiale verlenging ten opzichte van hun respectievelijke vehicle-controles. Gegevens worden weergegeven als gemiddelde ± SD (N = 5 dieren per groep, wat overeenkomt met 5 OS- en 5 OD-ogen per groep). Statistische significantie werd geëvalueerd met behulp van een two-way repeated-measures ANOVA, gevolgd door de post hoc test van Sidak; *p < 0,05, ****p < 0,0001 ten opzichte van de overeenkomstige vehicle-controle. Afkortingen: OS, oculus sinister (linkeroog); OD, oculus dexter (rechteroog). Klik hier om dit bestand te downloaden.
Aanvullende figuur 2: Veiligheidsevaluatie van de structurele integriteit van het netvlies en de elektrofysiologische functie na subconjunctivale TGF-β2 toediening. (A) Representatieve hematoxylline en eosine (H&E)&(E)-gekleurde sagittale retinaal doorsneden van controle- en TGF-β-βmet 2 behandelde muizen (250 pg/oog) en ratten (500 pg/oog) op dag 21, waaruit blijkt dat de architectuur van de retinale lagen over de soorten heen behouden is gebleven (N = 3 onafhankelijke biologische replicaten per groep). Schaalbalken = 20 µm. (BRepresentatieve scotopische elektroretinografie (ERG)-golfvormen geregistreerd bij muizen op dag 21, waarbij vehicle-controle-ogen (grijze lijn) en TGF-βbehandelde ogen (rode lijn). Vergelijkbare dynamiek van de a-golf en b-golf respons bevestigt behoud van de lichtgevoeligheid van het netvlies en elektrofysiologische veiligheid (N = 3 muizen per groep, wat overeenkomt met 6 ogen per groep). Afkortingen: GCL, ganglioncellaag; INL, binnenste kernlaag; ONL, buitenste kernlaag. Klik hier om dit bestand te downloaden.
Discussie
Een opvallende bevinding in het onderzoek is het niet-lineaire, omgekeerd U-vormige dosis-responsprofiel dat wordt opgewekt door TGF-β2 in de muiscohort, waar de laagste toegediende dosis (250 pg/oor) de meest opvallende axiale verlenging induceerde (Figuur 2B). Dit biphasische fenomeen is kenmerkend voor vele krachtige cytokinesignaleringwegen, waaronder de TGF-β superfamilie29,30. Te hoge concentraties exogene TGF-β2 kan leiden tot receptorverzadiging of intracellulaire negatieve feedbacklussen activeren—zoals de upregulatie van het remmende SMAD-familie lid 7 (Smad7) of receptor-gemedieerde endocytose—waardoor de downstream biologische responsen worden afgezwakt31,32. De immunofluorescentiegegevens ondersteunen dit farmacologische venster verder; terwijl de dosis van 250 pg bij muizen (en 500 pg bij ratten) leidde tot een matige verhoging van TGF-β in het netvliesβ2-retentie, activeerde het tegelijkertijd een krachtige neerwaartse ontstekingscascade (Figuur 5F). Dit suggereert dat de geoptimaliseerde lage dosisdrempel zich binnen een zeer gevoestig fysiologisch venster bevindt, waarbij de werkzaamheid op het doelweefsel wordt gemaximaliseerd en tegelijk ligand-geïnduceerde desensibilisatie of gelokaliseerde suppressie wordt vermeden33Daarom onderstrepen deze bevindingen de noodzaak van een zorgvuldige dosistitratie bij het opzetten van reproduceerbare knaagdiermodellen van chemisch geïnduceerde myopie.
In vergelijking met traditionele modellen van vormdeprivatiemyopie (FDM) of door hyperopisch defocuslenzen geïnduceerde myopie (LIM)—die aangepaste hardware vereisen en gevoelig zijn voor lensverplaatsing, loskoppeling door grooming en corneale complicaties—het subconjunctivale protocol biedt direct farmacologisch toezicht en minimale kosten voor apparatuur13,34. In overeenstemming met eerdere studies die aantonen dat periculaire toediening de sclerale en retinale TGF-β signaleren35, tonen deze gegevens biologische reacties in het achterste segment na anterieure subconjunctivale toediening van TGF-β2 toediening (Figuur 4 en Figuur 5). Deze efficiënte posteriorale targeting wordt toegeschreven aan de unieke oculaire schubben en vloeistofdynamica van kleine knaagdieren. Gezien de korte axiale lengte van de ogen van knaagdieren (~3 mm bij muizen en ~6 mm bij ratten) spoelt een subconjunctivale toediening een relatief groot deel van het episclerale vlak. Gedreven door de hoge transsclerale permeabiliteit en de anatomische continuïteit van de sub-Tenon-ruimte, kan de geïnjecteerde formulering door de sclera en choroïd naar de achterpool diffunderen. Van cruciaal belang is dat deze toedieningsweg geassocieerd is met biologische effecten in de achterste oogweefsels, terwijl de ernstige risico's van doorboring van het oogbol en beschadiging van de oogzenuw, die inherent zijn aan diepe posteriore sub-Tenon- of intravitreale injecties bij kleine knaagdieren, worden vermeden. Deze aanpak voorkomt de mechanische en gedragsmatige storende factoren van op het hoofd gemonteerde lenzen.13,36, evenals de goed gedocumenteerde risico's van netvliesloslating en endofthalmitis die geassocieerd zijn met intravitreale injectie37,38Bovendien verbetert het verdelen van de biometrische metingen over twee korte sessies de conventionele paradigma's met een enkele sessie. Langdurige blootstelling aan anesthesie veroorzaakt vaak oculaire verstoringen—zoals anesthesie veroorzakende cataracten bij muizen en spontane palpebrale sluiting bij ratten—die de nauwkeurigheid van refractieve en axiale metingen verlagen39,40. Door de refractiefout te scheiden (Dagen –1 en 20) en axiale lengte (Dagen 0 en 21) zijn opgenomen, is het protocol ontworpen om potentiële cumulatieve oculaire belasting te minimaliseren en consistente beeldvormingsomstandigheden te handhaven, wat kan helpen om intra-experimentele variabiliteit te verminderen. Om verdere potentiële storende variabelen te elimineren die voortkomen uit systemische kruisbesmetting—zoals systemische vasculaire absorptie of lymfatische transport die niet-doelweefsel beïnvloeden—evenals contralaterale sympathische responsen, werd een strikt interindividueel ontwerp toegepast. Door bilaterale toediening van een vehiculumcontrole of bilaterale toediening van actief rhTGF-β2 binnen individuele dieren voorkomt dit paradigma interoculaire contaminatie terwijl een robuuste farmacologische evaluatie wordt gewaarborgd. Bestendig bevestigden afzonderlijke biometrische analyses van de gepaarde linker- en rechterogen een hoge interoculaire symmetrie, waardoor werd aangetoond dat het combineren van bilaterale gegevens geen statistische of fysiologische bias introduceerde binnen de behandelingsgroepen (Aanvullende afbeelding 1).
Dit knaagdiermodel weerspiegelt effectief de TGF-β2–aangedreven inflammatoire en matrix-remodeling-as die eerder is vastgesteld in studies door de auteurs bij boomaardvarkens en bruine Noorse ratten21,41. Eerdere onderzoeken van de auteurs toonden aan dat exogene TGF-β of TGF-β2 versterkte intraoculaire ontsteking—met name via NF-κB en IL-1β activering—terwijl MMP2-expressie wordt verhoogd, collageen I in de sclera wordt verlaagd en axiale verlenging wordt bevorderd42,43Omgekeerd onderdrukte het verzwakken van complement- en inflammasoomactiviteit via complement decay-accelerating factor (CD55) zowel lokale ontsteking als de voortgang van bijziendheid.41,44Soortgelijke chronische ontstekingspatronen, gekenmerkt door verhoogde MMP2-activatie en daaropvolgend verlies van collageen I, zijn ook zichtbaar bij klassieke modellen van vormdeprivatie en bij patiënten met pathologische hoge myopie42,43,45,46. Belangrijk is dat TGF- in plaats van te fungeren als een geïsoleerde of universele primaire inductor die uniform in alle weefsels werkt,β (specifiek de TGF-β2-isoform) fungeert als een contextafhankelijke signaalbrug. Deze verbindt ontstekingsgerelateerde signalering in het vroege stadium in het netvlies/RPE—specifiek via NLRP3-inflammasoom en complementactivatie—naar afstroomscleraal extracellulair matrix (ECM)21,41. Het herkennen van deze ruimtelijke en tijdelijke overgang verhelpt schijnbare inconsistenties in de literatuur met betrekking tot TGF-β expressie, aangezien de dynamiek ervan verschuift van vroege lokale ontstekingsversterking in het netvlies/RPE naar latere, door MMP's gemedieerde matrixafbraak in de sclera47,48. Specifiek bepaalt de structurele uitvoering van de afbraak van de sclerale ECM uiteindelijk de fysieke oogverlenging (Figuur 4), de moleculaire bevindingen benadrukken het buitenste netvlies en het RPE als de primaire upstream signaalbronFiguur 5). Hierbij maakte de huidige studie uitsluitend gebruik van kwantitatieve immunofluorescentie (IF) om de in situ ruimtelijke distributie en laaggewijze upregulatie van deze markers in kaart te brengen, terwijl de algehele gen- en proteïnedynamiek (via RT-qPCR en Western blot, respectievelijk) van deze geretinaliseerde gefosforyleerde nucleaire factor kappa B (p-NF-κB)/IL-1β/tumor necrose factor-alfa (TNF-α)/NLRP3-cascade onder identieke TGF-β2 inductieparadigma's zijn in eerdere studies door de auteurs onafhankelijk van elkaar gevestigd46,49. Subconjunctivale TGF-β2 activeert de NLRP3/IL-1β–MMP2-cascade binnen het netvlies/RPE, die zich verspreidt langs de retino-chorioïdaal-sclerale as en leidt tot afstroomsche sclaire MMP2-expressie en matrixremodellering. Deze overeenkomsten ondersteunen krachtig de centrale rol van laaggradige ontsteking en MMP-gemedieerde remodellering van de scleraire extracellulaire matrix (ECM) bij versnelde ooggroei.
Ondanks deze procedurele voordelen zijn er enkele beperkingen van het huidige protocol die overwogen moeten worden. Ten eerste, aangezien dit een puur farmacologisch model is dat wordt aangedreven door exogene cytokine-toediening, omzeilt deze aanpak de optische defocus en de lichtsignaaltransductie van retina naar sclera die kenmerkend zijn voor traditionele modellen van vormdeprivatiemyopie (FDM) of lensgeïnduceerde myopie (LIM).16,50. Bijgevolg, hoewel zeer geschikt voor het richten op downstream biochemische cascades—specifiek de ontstekings-MMP2-remodelingas—het is een aanvulling op, en geen vervanging voor, modellen die upstream visuele verwerking of optische manipulaties onderzoeken51Ten tweede, hoewel subconjunctivale injectie systemische toxiciteit en intravitreale risico's omzeilt, brengt de noodzaak van herhaalde micro-injecties (eenmaal per week gedurende 3 weken) tijdelijke, gelokaliseerde mechanische verstoringen en korte blootstelling aan anesthesie met zich mee, wat op subtiele wijze de homeostase van het oculaire oppervlak kan beïnvloeden indien niet strikt uitgevoerd38,52. Reproduceerbare inductie van experimentele myopie via deze route is sterk afhankelijk van een precieze technische uitvoering tijdens de subconjunctivale toediening. De belangrijkste technische bepalende factor voor succes is de juiste oppervlakkige insteek met de afschuining onder de palpebrale conjunctiva om een gelokaliseerde, duidelijk afgebakende submucosale bleb (chemosis) te vormen. Verificatie via directe transilluminatie zorgt ervoor dat de vloeistof binnen het weefselvlak blijft, waardoor onbedoelde sclerale perforatie, diepe orbitale extravasatie of microvasculaire lacratie worden voorkomen. Om postinjectie-reflux van vloeistof of actief lekken te voorkomen—een veelvoorkomende foutmodus die een effectieve farmacologische dosering in gevaar brengt—De micronaald dient na toediening 5 seconden ter plaatse te worden gehouden, gevolgd door een langzame, gestage terugtrekking onder visuele controle. In gevallen waar directe reflux, onvoldoende blebhoohe of onopzettelijke weefselhemorragie optreedt bij terugtrekking, dienen de dieren te worden gedocumenteerd en volgens vooraf vastgestelde criteria uitgesloten te worden om verwarrende variabiliteit te voorkomen. Het strikt volgen van deze technische normen garandeert een hoge mate van nauwkeurige, gerichte posterieure retentie van het geneesmiddel, terwijl oculaire oppervlaktetrauma wordt geminimaliseerd. Bovendien kunnen, hoewel de absolute refractiestatus (bijvoorbeeld -1,58 D bij muizen en -1,38 D bij ratten) in knaagdiermodellen bescheiden lijken ten opzichte van hun hoge basale dioptrische kracht, de netto myopische verschuivingen ten opzichte van vehicle-controles aanzienlijk zijn (+3,83 D bij muizen en +1,69 D bij ratten; beide p < 0,001). < 0,05) en strikt concordant met structurele axiale verlenging en downstream upregulatie van sclerale MMP2 bij beide soorten. Belangrijk is dat evaluaties van veiligheid en fysiologische verdraagbaarheid de niet-cytotoxische aard bevestigden van dit laagdosis subconjunctivale toedieningsparadigma. Histologische dwarsdoorsneden (H&E) toonde een goed bewaarde retinale laagarchitectuur in zowel muizen als ratten, terwijl scotopische elektroretinografie (ERG) op dag 21 intacte a- en b-golfresponsen aantoonde, zonder vertragingen in impliciete tijd of verlaging van de amplitudo (Aanvullende figuur 2), wat bevestigt dat gelokaliseerde TGF-β2 delivery induceert gerichte axiale verlenging zonder structurele retinopathie of elektrofysiologische stoornissen te veroorzaken. Ten derde vatten de eindpuntanalyses in week 3 acute tot subacute ontstekingsreacties en matrixremodelering samen; langdurige onderzoeken zijn nodig om te bepalen of deze fenotypische veranderingen na de behandeling aanhouden of hersteldynamiek vertonen na uitspoeling41,53. Ten slotte, hoewel directe farmacokinetische en oculaire weefselpenetratie-analyses van exogeen TGF-β2 vielen buiten het bereik van deze modelvalideringsstudie, de robuuste en consistente biometrische veranderingen (axiale verlenging en verandering in refractieafwijking), samen met de specifieke retina/RPE-moleculaire activaties die zijn vastgesteld in eerdere studies door de auteurs46,49, ondersteunen een effectieve biologische werking in de achterste oogstructuren. Toekomstige onderzoeken die verdere profielen van eiwitexpressie (bijvoorbeeld Western blotting), RT-qPCR of fluorescerend gemerkte TGF-β2-tracking zal de precieze weefseldistributie en klaringkinetiek verder verduidelijken. Het inzicht in deze grenzen zal onderzoekers leiden bij de keuze van dit model voor geschikte therapeutische screening en mechanistische validatie.
Door aan te tonen dat subconjunctivale TGF-β2 activeert de NLRP3/IL-1β–MMP2-as binnen de buitenste retina en het retinale pigmentepitheel (RPE) van zowel Brown Norway-ratten als C57BL/6-muizen biedt het protocol een farmacologisch gedefinieerd kader dat deze ontstekings- en matrix-remodeling-wegen bij knaagdieren valideert. Derhalve de TGF-β2–het geïnduceerde model dient als een betrouwbaar platform voor het standaardiseren van de inductie van axiale verlenging, het ontrafelen van retino-sclerale signaalroutes en het screenen van preklinische interventies gericht op TGF-β2, complementcomponenten, het inflammasoom of MMP2.
Openbaarmakingen
De auteurs hebben geen openbaarmakingen of belangenconflicten te verklaren die relevant zijn voor deze studie. AI-ondersteunde taaltools werden uitsluitend gebruikt voor grammaticaal bewerken en het verfijnen van de Engelse syntaxis tijdens de voorbereiding van het manuscript. Er zijn geen generatieve AI-tools gebruikt bij de data-acquisitie, beeldverwerking, kwantitatieve analyse of het opstellen van figuren.
Dankbetuigingen
Experimenten en gegevensanalyse zijn gedeeltelijk uitgevoerd met behulp van de Medical Research Core Facilities, kantoor van onderzoek & Ontwikkeling, China Medical University, Taichung, Taiwan, R.O.C. De auteurs danken oprecht het National Center for Biomodels (NCB, NIAR, Taiwan) en BioLASCO Taiwan Co., Ltd. voor hun uitstekende technische ondersteuning bij contractuele fok- en dierleveringsdiensten. Bovendien zijn de schematische weergave en microchirurgische procedures weergegeven in Figuur 1 ontworpen en op maat gemaakt met behulp van vectorafbeeldingen in hoge resolutie van Mind the Graph (mindthegraph.com, Premium License) en professioneel samengesteld en verfijnd met Affinity Designer (Serif Europe Ltd.). De onderzoeksfinanciering werd gedeeltelijk verstrekt door de National Science and Technology Council, Taiwan, R.O.C. (NSTC-112-2314-B-039-029; 115-2320-B-039-056), het China Medical University Hospital, Taichung, Taiwan (DMR-114-091; DMR-115-117) en de China Medical University, Taichung, Taiwan (CMU114-MF-78; CMU-114-ASIA-10). De financiers hadden geen rol in het onderzoeksontwerp, de verzameling en analyse van gegevens, het besluit tot publicatie of de voorbereiding van het manuscript. De sponsor of financierende organisatie had geen invloed op het ontwerp of de uitvoering van dit onderzoek.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Geautomatiseerde infraroodfotorefractometer | StriaTech GmbH (TüBingen, Duitsland) | ST-PR.01 | Met soortspecifieke instellingen voor muis/rat |
| Gebalanceerde zoutoplossing (BSS) | Alcon Laboratories, Inc. (Fort Worth, VS) | Kunt u de brontekst verstrekken die u wilt laten vertalen? Zodra u de tekst invoert, zal ik deze volgens uw specifieke richtlijnen vertalen naar academisch Nederlands. | Steriele intraoculaire irrigatievloeistof |
| Runder-serumalbumine (BSA) | Sigma-Aldrich (St. Louis, USA) | A3059 | Gelyofiliseerd poeder, 0,1% fractie V |
| Brown Norway (BN)-ratten | BioLASCO Taiwan Co., Ltd. en/of het National Center for Biomodels | https://www.biolasco.com.tw/product/brown-norway-rats/ | |
| C57BL/6 (B6) muizen | BioLASCO Taiwan Co., Ltd. en/of het National Center for Biomodels | **Dierinformatie** **Naam:** Rat **Wetenschappelijke naam:** *Rattus norvegicus* **Kenmerken:** De rat is een van de meest gebruikte diermodellen in biomedisch onderzoek vanwege zijn fysiologische en genetische gelijkenis met mensen. Ze vertonen complex sociaal gedrag en zijn relatief gemakkelijk te hanteren en te fokken in een laboratoriumomgeving. **Toepassingen in onderzoek:** - Toxicologie en farmacologie - Neurowetenschappen en gedragsstudies - Cardiologie en endocrinologie - Immunologie en oncologie **Voordelen:** - Groter dan muizen, wat chirurgische ingrepen en het verzamelen van grotere hoeveelheden bloed of weefsel vergemakkelijkt. - Goed gedocumenteerde genetische achtergronden en fysiologische parameters. - Hoge intelligentie en leervermogen, ideaal voor cognitieve studies. **Zorg en beheer:** Ratten moeten worden gehuisvest in een gecontroleerde omgeving met adequate ventilatie, voeding en hydratatie. Sociale interactie is essentieel voor hun welzijn; daarom worden ze doorgaans in groepen gehuisvest. Regelmatige gezondheidscontroles en naleving van ethische richtlijnen voor dierproeven zijn verplicht.&nid=3&pagina=0&type=1 | |
| DAPI-oplossing (1 mg/mL) | Thermo Scientific (Thermo Fisher Scientific, Waltham, USA) | 62248 | Gebruikt in een werkverdunning van 1:500 voor immunofluorescentie. |
| Absolute ethanol (≥99.5%) | J.T.Baker (Avantor Performance Materials, Radnor, USA) | Aangezien er geen brontekst is verstrekt, kan ik geen vertaling uitvoeren. Voeg alstublieft de Engelse tekst toe die u vertaald wilt hebben naar het Nederlands. | Reagenskwaliteit, 75% voor spoelen, 20%–100% voor dehydratatie |
| Fiber-Lite illuminator (150 W, dubbele zwanenhals) | Stoelting Co. (Wood Dale, USA) | Omdat u geen brontekst heeft verstrekt, kan ik geen vertaling maken. Stuur me alstublieft de Engelse tekst die u naar het Nederlands vertaald wilt hebben. | Lichtbron met hoge intensiteit |
| Fijngepuntee micropincetten | Stephens Instruments (Lexington, USA) | S5-1375 | Recht, gekarteld, met een geleidepen |
| Ginpol ooggel | Winston Medical Supply Co., Ltd. (Tainan, Taiwan) | Geen gegevens beschikbaar | Carbomeer 0,2%, hoornvliesbescherming |
| Glycerol (Moleculaire Biologie, ≥99.0%) | Sigma-Aldrich (St. Louis, USA) | G5516 | Reagenskwaliteit, 50% werkmatrix |
| Geit anti-konijn IgG (H+L) secundair antilichaam, Alexa Fluor Plus 555 | Invitrogen (Thermo Fisher Scientific, Waltham, USA) | A32732 | Gebruikt bij een werkverdunning van 1:800 voor immunofluorescentie. |
| Handheld elektroretinografisch systeem voor meerdere soorten (HMSERG) | OcuScience (Henderson, USA) | Model 2000 (HMsERG-2000), Full-field flash ERG-systeem voor knaagdieren met ERGView-software. | |
| Hartman′Fixeermiddel (Davidson's fixeermiddel) | Sigma-Aldrich (St. Louis, USA) | H0290 | Snel fixatiecocktail voor oculaire geometrie |
| Hoogfrequente echoprobe | ASUSTeK Computer Inc. (Taipei, Taiwan) | LU710LH | Handheld, frequentie van 16 MHz |
| Micro-injectienaald (33-G) | Hamilton Company (Reno, USA) | 7803-05 | Puntstijl 4, geringe fasingshoek |
| Micro-injectiespuit (10 µL) | Hamilton Company (Reno, USA) | 80014 (#1701) | Gasdichte microliter-spuit |
| Mydrin-P oogoplossing | Santen Pharmaceutical Co., Ltd. (Osaka, Japan) | Omdat er geen brontekst is verstrekt, kan ik geen vertaling produceren. Voeg alstublieft de tekst toe die u vertaald wilt hebben. | 0,5% Tropicamide / 0,5% Fenylefrine |
| Normaal geiten serum | Jackson ImmunoResearch Laboratories, Inc. (West Grove, USA) | 005-000-121 | Gebruikt als een 10% blokkeringsoplossing voor immunofluorescentie. |
| Software voor fotorefractometrie-acquisitie | StriaTech GmbH (TüBingen, Duitsland) | Omdat er geen brontekst is verstrekt, kan ik geen vertaling genereren. Voer a.u.b. de Engelse tekst in die u vertaald wilt hebben naar het Nederlands. | Geautomatiseerde verwerking van het gemiddelde sferische equivalent |
| Konijnen anti-IL1 bèta monoklonaal antilichaam (HL1421) | GeneTex, Inc. (Irvine, USA) | GTX636887 | Gebruikt in een werkverdunning van 1:500 voor immunofluorescentie. |
| Konijn anti-MMP2 polyklonaal antilichaam | GeneTex, Inc. (Irvine, USA) | GTX104577 | Gebruikt in een werkverdunning van 1:500 voor immunofluorescentie. |
| Konijn anti-NLRP3 polyklonaal antilichaam | Abcam (Cambridge, UK) | ab214185 | Gebruikt bij een werkverdunning van 1:400 voor immunofluorescentie. |
| Konijn anti-TGF-beta 2 polyklonaal antilichaam | AbboMax, Inc. (San Jose, USA) | 500-3784 | Gebruikt bij een werkverdunning van 1:250 voor immunofluorescentie. |
| Recombinant humaan TGF-β1 | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-21 | Gelyofiliseerd poeder, hoge zuiverheid |
| Recombinant humaan TGF-β2 | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-35 | Gelyofiliseerd poeder, hoge zuiverheid |
| Recombinant menselijk TGF-β3 | PeproTech (Thermo Fisher Scientific, Cranbury, USA) | 100-36 | Gelyofiliseerd poeder, hoge zuiverheid |
| Steriele Aquasonic 100 ultrasone gel | Parker Laboratories, Inc. (Fairfield, USA) | Omdat er geen brontekst is verstrekt, kan ik geen vertaling genereren. Voer aub de tekst in die u vertaald wilt hebben naar het Nederlands. | Standaard akoestische koppelingsmatrix |
| Software voor echografische beeldvorming | ASUSTeK Computer Inc. (Taipei, Taiwan) | Omdat er geen brontekst is verstrekt, kan ik geen vertaling genereren. Voer alstublieft de Engelse tekst in die u vertaald wilt hebben naar het Nederlands. | Voor live B-scan visualisatie en calipers |
Referenties
- Holden BA, et al. Myopia: a growing global problem with sight-threatening complications. Community eye health. 2015;28(90):35.
- Holden BA, et al. Global prevalence of myopia and high myopia and temporal trends from 2000 through 2050. Ophthalmology. 2016;123(5):1036-42.
- McMonnies CW. An examination of the relation between intraocular pressure, fundal stretching, and myopic pathology. Clinical and Experimental Optometry. 2016;99(2):113-9.
- Fledelius HC. Myopia and significant visual impairment: global aspects [Presentation]. Presented at: 7th International Conference on Myopia; Taipei, Taiwan; 1998.
- Park SC, Liebmann JM, Ritch R. Glaucoma in myopia. Pathologic Myopia: Springer; 2013. p. 283-92.
- Gale J, Ikuno Y. Ii. B. Myopic Vitreopathy. Vitreous: In Health and Disease: Springer; 2014. p. 113-29.
- Saw SM, Gazzard G, Shih-Yen EC, Chua WH. Myopia and associated pathological complications. Ophthalmic and Physiological Optics. 2005;25(5):381-91.
- Tkatchenko TV, Shen Y, Tkatchenko AV. Mouse Experimental Myopia Has Features of Primate Myopia. Investigative Ophthalmology & Visual Science. 2010;51(3):1297-303.
- Morgan IG, Ashby RS, Nickla DL. Form deprivation and lens-induced myopia: are they different? Ophthalmic Physiol Opt. 2013;33(3):355-61.
- Barathi VA, Boopathi VG, Yap EP, Beuerman RW. Two models of experimental myopia in the mouse. Vision Res. 2008;48(7):904-16.
- Zhao HL, Wang RQ, Wu MQ, Jiang J. Dynamic changes of ocular biometric parameters: a modified form-deprivation myopia model of young guinea pigs. Int J Ophthalmol. 2011;4(5):484-8.
- Wu XH, et al. Unaltered retinal dopamine levels in a C57BL/6 mouse model of form-deprivation myopia. Invest Ophthalmol Vis Sci. 2015;56(2):967-77.
- Faulkner AE, Kim MK, Iuvone PM, Pardue MT. Head-mounted goggles for murine form deprivation myopia. J Neurosci Methods. 2007;161(1):96-100.
- Wang Y, Zhang Y, Tian N. Cause and Management of Suture-related Ocular Complications after Buried-suture Double-eyelid Blepharoplasty. J Plast Reconstr Aesthet Surg. 2021;74(12):3431-6.
- Pang K, Lennikov A, Yang M. Hypoxia adaptation in the cornea: Current animal models and underlying mechanisms. Animal Model Exp Med. 2021;4(4):300-10.
- Schaeffel F, Feldkaemper M. Animal models in myopia research. Clinical and Experimental Optometry. 2015;98(6):507-17.
- Harper AR, Summers JA. The dynamic sclera: extracellular matrix remodeling in normal ocular growth and myopia development. Exp Eye Res. 2015;133:100-11.
- Jobling AI, Nguyen M, Gentle A, McBrien NA. Isoform-specific changes in scleral transforming growth factor-beta expression and the regulation of collagen synthesis during myopia progression. J Biol Chem. 2004;279(18):18121-6.
- Vranka JA, Kelley MJ, Acott TS, Keller KE. Extracellular matrix in the trabecular meshwork: intraocular pressure regulation and dysregulation in glaucoma. Exp Eye Res. 2015;133:112-25.
- Tien P-T, et al. Diacerein inhibits myopia progression through lowering inflammation in retinal pigment epithelial cell. Mediators of Inflammation. 2021;2021(1):6660640.
- Ku H, et al. The role of transforming growth factor beta in myopia development. Molecular immunology. 2024;167:34-42.
- Yin X, Ge J. The role of scleral changes in the progression of myopia: a review and future directions. Clinical Ophthalmology. 2025:1699-707.
- Schippert R, Brand C, Schaeffel F, Feldkaemper MP. Changes in scleral MMP-2, TIMP-2 and TGFβ-2 mRNA expression after imposed myopic and hyperopic defocus in chickens. Experimental eye research. 2006;82(4):710-9.
- Xin J, et al. Crosstalk between myopia and inflammation: a mini review. International journal of medical sciences. 2024;21(9):1589.
- Zhang K, et al. Elevated Transforming Growth Factor-β2 in the Aqueous Humor: A Possible Explanation for High Rate of Capsular Contraction Syndrome in High Myopia. Journal of Ophthalmology. 2016;2016(1):5438676.
- Zhang M, et al. Complement and local ocular inflammatory response: Chronic immune factors in myopia. Science Progress. 2025;108(3):00368504251383046.
- Meng L, et al. Aqueous Humour Cytokines as Predictors of Axial Elongation in High Myopia: A 2-Year Longitudinal Cohort Study. Clinical & Experimental Ophthalmology. 2026;54(6):756-768.
- Miller DA, et al. Murine transforming growth factor-β2 cDNA sequence and expression in adult tissues and embryos. Molecular Endocrinology. 1989;3(7):1108-14.
- Langer JC, Henckaerts E, Orenstein J, Snoeck HW. Quantitative trait analysis reveals transforming growth factor-beta2 as a positive regulator of early hematopoietic progenitor and stem cell function. J Exp Med. 2004;199(1):5-14.
- Shinar DM, Rodan GA. Biphasic effects of transforming growth factor-beta on the production of osteoclast-like cells in mouse bone marrow cultures: the role of prostaglandins in the generation of these cells. Endocrinology. 1990;126(6):3153-8.
- Heldin CH, Moustakas A. Signaling Receptors for TGF-β Family Members. Cold Spring Harb Perspect Biol. 2016;8(8).
- Zhao B, Chen YG. Regulation of TGF-β Signal Transduction. Scientifica (Cairo). 2014;2014:874065.
- Akhurst RJ. Targeting TGF-β Signaling for Therapeutic Gain. Cold Spring Harb Perspect Biol. 2017;9(10).
- Pardue MT, Stone RA, Iuvone PM. Investigating mechanisms of myopia in mice. Exp Eye Res. 2013;114:96-105.
- Cordeiro MF, Gay JA, Khaw PT. Human Anti-Transforming Growth Factor-β2 Antibody: A New Glaucoma Anti-Scarring Agent. Investigative Ophthalmology & Visual Science. 1999;40(10):2225-34.
- Guo ZV, et al. Procedures for Behavioral Experiments in Head-Fixed Mice. PLOS ONE. 2014;9(2):e88678.
- Jager RD, Aiello LP, Patel SC, Cunningham ET, Jr. Risks of intravitreous injection: a comprehensive review. Retina. 2004;24(5):676-98.
- Lommatzsch AP, et al. Endophthalmitis als schwere Komplikation der intravitrealen Medikamentengabe. Klin Monbl Augenheilkd. 2013;230(11):1130-4.
- Li XT, Qin Y, Zhao JY, Zhang JS. Acute lens opacity induced by different kinds of anesthetic drugs in mice. Int J Ophthalmol. 2019;12(6):904-8.
- Tkatchenko TV, Tkatchenko AV. Ketamine-xylazine anesthesia causes hyperopic refractive shift in mice. J Neurosci Methods. 2010;193(1):67-71.
- Lin S-C, et al. The Function of Transforming Growth Factor 2 in Facilitating Inflammas ome Activation to Enhance the Development of Myopia via Complement Sys tem. Cells. 2025;14(16):1295.
- Wei CC, et al. Allergic Conjunctivitis-induced Retinal Inflammation Promotes Myopia Progression. EBioMedicine. 2018;28:274-86.
- Wei CC, et al. Corrigendum to "Allergic Conjunctivitis-induced Retinal Inflammation Promotes Myopia Progression" [EBioMedicine 28 (2018) 274-286]. EBioMedicine. 2019;41:717-8.
- Lin HJ, et al. Role of Chronic Inflammation in Myopia Progression: Clinical Evidence and Experimental Validation. EBioMedicine. 2016;10:269-81.
- Lin HJ, et al. Sclera-related gene polymorphisms in high myopia. Mol Vis. 2009;15:1655-63.
- Lin CF, et al. Harnessing Lactiplantibacillus plantarum EP21 and its membrane vesicles to inhibit myopia development. Gut Microbes. 2025;17(1):2534677.
- Chou Y-L, et al. Complement decay-accelerating factor inhibits inflammation-induced myopia development. Molecular Immunology. 2024;171:47-55.
- Ku H, et al. Myopia development in tree shrew is associated with chronic inflammatory reactions. Current Issues in Molecular Biology. 2022;44(9):4303-13.
- Chou Y-L, et al. Vitamin D3 Reshapes Gut Microbiota and Metabolite Profiles in a Rat Model of Inflammation-Induced Myopia. Biomolecules. 2026;16(7):939.
- Wallman J, Winawer J. Homeostasis of eye growth and the question of myopia. Neuron. 2004;43(4):447-68.
- Morgan IG, et al. IMI Risk Factors for Myopia. Investigative Ophthalmology & Visual Science. 2021;62(5).
- Wildsoet C, et al. IMI-interventions for controlling myopia onset and progression report. Investigative Ophthalmology and Visual Science. 2019;60(3):M106-M31.
- Rada JAS, Shelton S, Norton TT. The sclera and myopia. Experimental eye research. 2006;82(2):185-200.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar