Deze studie demonstreert dat miR-1298 nauw geassocieerd is met invasie en migratie bij CRC en mogelijk functioneert als tumorsuppressor door de progressie van CRC te remmen, wat het potentieel ervan als een nieuw therapeutisch doelwit voor de behandeling van CRC benadrukt.
Onderzoeksartikel
De rol van de miR-1298/Bone Morphogenetic Protein 7-as bij colorectale kanker
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
De incidentie van colorectale kanker (CRC) is de laatste jaren gestegen. We hebben de klinische significantie en moleculaire mechanismen van miR-1298 bij CRC onderzocht. In totaal werden 85 patiënten met CRC geïncludeerd. Alle genexpressieniveaus werden geëvalueerd via RT-qPCR. In CRC-cellen werden de niveaus van miR-1298 en bone morphogenetic protein 7 (BMP7) gereguleerd middels celtransfectie. Het doelwit van miR-1298 werd voorspeld met behulp van bio-informatische analyse en geïdentificeerd via het dual-luciferase reporter-systeem. De functie van CRC-cellen werd beoordeeld met de CCK-8 assay, de Transwell assay en flowcytometrie. De correlatie tussen miR-1298 en BMP7 in CRC-weefsels werd geanalyseerd met de correlatiecoëfficiënt van Pearson. miR-1298 was aanzienlijk downgereguleerd bij CRC en was geassocieerd met maligne clinicopathologische kenmerken. In CRC-cellen onderdrukte miR-1298 de proliferatie, migratie en invasie, en verhoogde het de apoptose. BMP7 was een downstream doelwit van miR-1298 en was negatief gecorreleerd met miR-1298. Overexpressie van BMP7 keerde het remmende effect van miR-1298 op proliferatie, migratie en invasie in CRC-cellen, evenals de bevordering van apoptose, gedeeltelijk om. miR-1298 was gerelateerd aan invasie en migratie en kan de progressie van CRC onderdrukken. BMP7 kan een potentiële functionele mediator van miR-1298 bij CRC zijn.
Inleiding
CRC vormt een aanzienlijke wereldwijde gezondheidslast en staat wereldwijd bekend als een van de belangrijkste veroorzakers van kankergerelateerde sterfgevallen1. CRC ontstaat uit de epitheelcellen van het colon-rectum en ontwikkelt zich gewoonlijk geleidelijk via een meerfasig proces dat bekendstaat als de progressie van adenoom naar carcinoom, een proces dat meerdere jaren in beslag neemt2. De gevolgen van CRC zijn verstrekkend en veelzijdig. Naast het risico op overlijden kan CRC ook een aanzienlijke impact hebben op het dagelijks leven van patiënten. De behandeling vereist doorgaans een grote operatie, wat kan leiden tot complicaties zoals een permanente colostomie, darmdysfunctie of seksuele en urinaire dysfunctie3. Daarnaast vormt de financiële last van chemotherapie, doelgerichte therapie en langdurige monitoring een aanzienlijke druk voor zowel de patiënten als het gezondheidszorgsysteem. Daarom blijft het onderzoeken van de moleculaire mechanismen die ten grondslag liggen aan CRC een belangrijke prioriteit binnen de volksgezondheid.
Bij colorectaal carcinoom (CRC) is de dysregulatie van specifieke microRNA's (miRNA's) een prominent kenmerk van tumorigenese en beïnvloedt dit cruciale processen4. De identificatie van deze differentieel tot expressie gebrachte miRNA's vergroot niet alleen ons begrip van de pathogenese van CRC, maar biedt ook potentiële mogelijkheden voor nieuwe diagnostische biomarkers en therapeutische doelwitten. Van de vele kanker-geassocieerde miRNA's is miR-1298 naar voren gekomen als een belangrijk onderzoekstarget. Huidig bewijs suggereert dat miR-1298 in diverse kankersoorten vaak fungeert als een tumorsuppressor. In niet-kleincellige longkanker (NSCLC) remt het bijvoorbeeld celgroei en invasie door belangrijke oncogene pathways te targeten5. Vergelijkbaar is bij hersentumoren de downregulatie ervan geassocieerd met tumorontwikkeling, terwijl herstel ervan de tumorprogressie remt6. Gegeven de vastgestelde tumorsuppressieve rol in andere kankers, blijft de specifieke rol van miR-1298 bij colorectale carcinogenese — in het bijzonder de downstream-targets en functionele gevolgen in CRC — grotendeels onontdekt. Deze kenniskloof is aanzienlijk, gezien het onderscheidende moleculaire landschap van CRC in vergelijking met andere maligniteiten.
BMP7 is een uitgescheiden, functioneel veelzijdige cytokine die behoort tot de transforming growth factor-β (TGF-β) superfamilie7. Bij CRC speelt BMP7 hoofdzakelijk een tumorbevorderende rol. BMP7 is veelal upgereguleerd in CRC-weefsels en -cellen8. BMP7 verhoogt de invasie, migratie en stamcelachtige eigenschappen van kankercellen, waarschijnlijk door pro-invasieve signaleringscascades te activeren en de tumormicro-omgeving te moduleren om migratie te bevorderen9. Bij verschillende soorten kanker zijn specifieke miRNA's geïdentificeerd als directe post-transcriptionele repressoren van BMP7. Zo target miR-137 BMP7 in NSCLC om celgroei te remmen10. Gezien deze bevindingen hypothetiseren wij dat BMP7 betrokken kan zijn bij CRC. Het is echter nog niet experimenteel gevalideerd of miR-1298 BMP7 direct target in CRC. Bovendien heeft geen enkele studie de miR-1298/BMP7-as in CRC uitgebreid gekarakteriseerd door mechanistische validatie, functionele fenotypering en klinische correlatie te integreren.
Daarom hadden we als doel om: (1) het regulatiepatroon van miR-1298 in CRC en de associatie ervan met clinicopathologische kenmerken te onderzoeken; (2) de effecten van miR-1298 op proliferatie, apoptose, invasie en migratie van CRC functioneel te karakteriseren; (3) BMP7 experimenteel te valideren als een doelwit van miR-1298 in CRC; en (4) de diagnostische en prognostische waarde van miR-1298 bij CRC-patiënten te evalueren. Door deze complementaire benaderingen te integreren, streefden we naar een uitgebreid begrip van de miR-1298/BMP7-as in CRC en naar het ontdekken van nieuwe biomarkers en therapiedoelen voor deze ziekte.
Protocol
Deze studie werd goedgekeurd door de Ethische Commissie van het Wuhan Brain Hospital (goedkeuringsnummer: 20220826). Alle deelnemers gaven schriftelijk geïnformeerde toestemming vóór inschrijving. Deze studie werd uitgevoerd in overeenstemming met de Verklaring van Helsinki. Toestemming voor publicatie werd verkregen van alle deelnemers van wie gegevens zijn opgenomen. Details van de gebruikte reagentia, kits, antilichamen, celijnen, plasmiden en apparatuur, inclusief fabrikanten en catalogusinformatie, zijn opgenomen in de Overzicht van materialen.
Patiënten en monsters
Van mei 2022 tot augustus 2024 verzamelden we gepaarde kankers en aangrenzende niet-kankers weefselmonsters van 85 patiënten met CRC. Geen van de deelnemers had een voorgeschiedenis van kanker, chemotherapie of bestralingstherapie. Daarnaast werden 71 gezonde proefpersonen die een lichamelijk onderzoek ondergingen, opgenomen in deze studie.
Prognose
De kritieke waarden voor de groepen met hoge/lage expressie van miR-1298 werden bepaald op basis van het mediaan expressieniveau in weefselmonsters van CRC-patiënten. De opvolgperiode bedroeg 12 maanden, waarbij opvolging plaatsvond per telefoon of via heronderzoek. Het eindpunt was overlijden. Van de 85 patiënten werden er 14 overleden tijdens de opvolgperiode, en er waren geen gecensureerde patiënten.
Celkweek en celtransfectie
De normale humane coloncellijn FHC, evenals de humane CRC-cellijnen SW480 en HCT-116, werden verkregen. De cellen werden gekweekt in Dulbecco's Modified Eagle Medium (DMEM) aangevuld met 10% fetale runderserum (FBS). miR-1298-mimic of -inhibitor werd getransfecteerd in SW480- en HCT-116-cellen met behulp van Lipofectamine 3000. Vervolgens werden miR-1298-mimic en pcDNA3.1-BMP7 (OE-BMP7) of de pcDNA3.1-vector (OE-NC) samen getransfecteerd in SW480-cellen en HCT-116-cellen. De specifieke stappen waren als volgt: de cellen werden gekweekt bij 37 °C met 5% CO₂₂ tot ze 70% bereikten–80% confluente. De cellen werden gezaaid bij 5 x 10⁴ cellen per putje in een 24-wellplaat en geïncubeerd gedurende een nacht. Een transfectiemengsel dat 250 µL van Opti-MEM, 1,25 µL van Lipofectamine 3000, 1,5 µL van P3000, 50 nM miRNA en 1 µg van plasmide werd bereid en 15 minuten geïncubeerd alvorens aan de cellen te worden toegevoegd. Het medium werd na 6 uur vervangen door compleet DMEM, en de monsters werden na 48 uur verzameld.
Bioinformaticaanalyse
Het doelwit van miR-1298 werd voorspeld met behulp van de TargetScan 8.0-database (https://www.targetscan.org/vert_80/). Vervolgens werd de voorspelde bindingsplaats tussen miR-1298 en BMP7 geïdentificeerd.
Dual-luciferase-reporterassay
Het wildtype en het gemuteerde 3′-UTR-sequenties van BMP7 die de voorspelde miR-1298-bindingsplaats bevatten, werden gekloneerd in de pmirGLO dual-luciferase-reportervector om respectievelijk de BMP7 Wt- en BMP7 Mut-reporterplasmiden te genereren. Voor de luciferase-assay werden SW480- en HCT-116-cellen co-getransfecteerd met ofwel het BMP7 Wt- of het BMP7 Mut-plasmide, samen met de miR-1298-mimic, inhibitor of hun overeenkomstige negatieve controles. De specifieke stappen waren als volgt: cellen werden uitgezaaid in 24-wellplaten bij 4 x 10⁴ cellen per putje. Elk putje werd co-getransfecteerd met 0,8 µg van rapporteurplasmide, 50 nM miR-1298-mimic, inhibitor of overeenkomstig negatief controle, en Lipofectamine 3000. Na 8 uur werd het kweekmedium afgezogen en werden de cellen gelysed door toevoeging van 100 µL passief lysistampon (PLB) gedurende 15 min. Een 20 µEen aliquot van het lysaat werd overgebracht naar een witte assaigplaat, 50 µL van LAR II werd toegevoegd en de activiteit van vuurvliegluciferase werd gemeten. Een extra 50 µL Stop&Glo-reagens werd toegevoegd om Renilla te meten. Tot slot werd de normalisatie van de gegevens voltooid.
RT-qPCR
RNA werd geëxtraheerd uit gekweekte cellen, serum en bevroren CRC-weefsels met behulp van TRIzol-reagens. Kort samengevat werden cellen rechtstreeks gelysed in 1 mL TRIzol per 10 cm-schaal; weefselfragmenten werden op ijs gehomogeniseerd in TRIzol. Na chloroformfasescheiding en isopropanolprecipitatie werden de RNA-pellets gewassen met 75% ethanol, luchtgedroogd en opgelost in RNase-vrij water. Zuiverheid en concentratie van RNA werden bepaald met een microvolume-spectrofotometer (A260/A280 = 1.8–2.1, A260/A230 > 2,0). Voor mRNA-analyse werd resterend genoom-DNA verwijderd met gDNA Eraser, en 500 ng RNA werd omgekeerd getranscribeerd met behulp van het PrimeScript RT Reagent Kit met oligo(dT) en random hexameren (37 °C gedurende 15 min en 85 °C gedurende 5 s). Voor miRNA-analyse werd 100 ng RNA omgezet in cDNA met een stem-loop-primer specifiek voor miR-1298-5p of U6 met behulp van het Mir-X miRNA First-Strand Synthesis Kit (16 °C gedurende 30 min, 42 °C gedurende 30 minuten, en 85 °C gedurende 5 s). Er werden no-RT- en no-template-controles opgenomen in elke run. cDNA werd passend verdund en opgeslagen bij −80 °C tot qPCR. De niveaus van miR-1298 en BMP7 werden gekwantificeerd met behulp van SYBR Green-chemie. U6 en GAPDH werden respectievelijk gebruikt als endogene controles voor miRNA- en mRNA-normalisatie. De relatieve expressie werd berekend met de comparatieve 2−ΔΔCt methode. De primersequenties (5′–3′) waren als volgt: miR-1298-forward: TCGGCAGGTTCATTCGGCTGTC, reverse: CTCAACTGGTGTCGTGGA; U6-forward: CTCGCTTCGGCAGCACA, reverse: AACGCTTCACGAATTTGCGT; BMP7-forward: CAAGAACCAGGAAGCCCTGC, reverse: TTCTTACAGGCCTGCCTCTGG; en GAPDH-forward: GACATGCCGCCTGGAGAAAC, reverse: AGCCCAGGATGCCCTTTAGT. De reactieomstandigheden voor qPCR waren als volgt: 95 °C voor 2 min, 35 cycli van 95 °C gedurende 30 s, 60 °C gedurende 30 s en 72 °C gedurende 60 s. cDNA-sjablonen werden seriëel (5-voudig) verdund om standaardcurven op te stellen. De amplificatie-efficiëntie E werd berekend met de formule: E = (10-1/slope-1) x 100%. De amplificatie-efficiëntie van de primers werd als volgt berekend: EmiR-1298 = 102,1%, EBMP7 = 96,3%, EGAPDH = 100,3%, EU6 = 99,8%. Alle primers voldeden aan het aanvaardbare efficiencybereik van 90–110%. Alle RT-qPCR-experimenten omvatten drie onafhankelijke biologische replicaten, elk met 3 technische replicaten. De stabiliteit van U6 en GAPDH werd beoordeeld met gebruik van het geNorm-algoritme. De M-waarden van beide genen waren lager dan de aanbevolen drempelwaarde van 1,5, wat hun geschiktheid bevestigt.
CCK-8-test (Cell Counting Kit-8)
SW480- en HCT-116-cellen werden in 96-wellplaten gezaaid op 2 x 10³ cellen/wel in 100 µL volledig DMEM en geïncubeerd gedurende 24 uur. 48 uur na transfectie werden de platen gedurende 1 uur geïncubeerd bij 37 °C. De extinctie bij 450 nm werd gemeten met een microplaatlezer. Per groep werden zes replicaten gebruikt en een blanco met medium plus CCK-8 zonder cellen werd afgetrokken.
Stroomcytometrie
Apoptose werd beoordeeld door middel van flowcytometrie met gebruik van een Annexin V-FITC/PI Apoptose Detectiekits. 48 uur na transfectie werden SW480- en HCT-116-cellen gewonnen door trypsinering, tweemaal gewassen met koud PBS en opnieuw gesuspendeerd in 1x bindingsbuffer bij 1 x 10⁶ cellen/mL. Aliquots van 1 x 10⁵ cellen werden overgebracht naar FACS-buizen, gekleurd met 5 µL van Annexin V-FITC en 5 µL van PI gedurende 15 minuten bij kamertemperatuur in het donker, en aangevuld tot 400 µL van bindingsbuffer vóór analyse. Niet-gekleurde, enkelvoudig gekleurde en met staurosporine behandelde positieve controles werden opgenomen voor compensatie en poortinstelling. De gegevens werden geanalyseerd met behulp van FlowJo-software (FlowJo 10.2).
Celmigratie en -invasie
De celmigratie en -invasie werden beoordeeld met behulp van 24-wells Transwell-chambers met een 8 µm poregrootte PET-membranen. Voor invasieassays werd het bovenste membraan van tevoren gecoat met 50 µL van Matrigel bij 37 °C gedurende 2 uur en geherhydrateerd met DMEM zonder serum gedurende 30 minuten alvorens te zaaien; bij migratie-assays werd deze coateringsstap overgeslagen. Getransfecteerde SW480- en HCT-116-cellen werden 12 uur gehongerd in DMEM zonder serum, waarna 2 x 10⁴ cellen in 100 µL van DMEM zonder serum, met 0,1% BSA, werden in de bovenste kamer geplaatst. De onderste kamer werd gevuld met 600 µL DMEM met 10% FBS als chemo-attractant. Na 24 uur (migratie) of 48 uur (invasie) bij 37 °C. Niet-ge migreerde cellen op het bovenoppervlak werden verwijderd met een wattenstaafje. Cellen op het onderoppervlak werden 15 minuten gefixeerd met 4% paraformaldehyde, 20 minuten gekleurd met 0,1% kristalviolet, gespoeld en aan de lucht gedroogd. Vijf willekeurige velden per membraan werden afgebeeld met 200x vergroting met behulp van een omgekeerde microscoop en handmatig geteld door twee onafhankelijke waarnemers.
Western blot
Totale cellulaire eiwitten werden geëxtraheerd door de cellen te homogeniseren in RIPA-lysisbuffer aangevuld met een proteaseremmercocktail. Eiwitconcentraties werden bepaald met een BCA-eiwitassaykit. Equivalente hoeveelheden eiwitlysaat (50 µg) werden gescheiden door 10% SDS-PAGE en vervolgens overgebracht naar PVDF-membraan. Na blokkering van niet-specifieke bindingsplaatsen met 2% BSA, werden de membranen geïncubeerd met primaire antilichamen tegen BMP7 (1:1.000) en GAPDH (1:2.000) gedurende 90 minuten bij 37 °C. Na drie keer wassen met PBST werden de membranen geïncubeerd met een met horseradish peroxidase (HRP) geconjugeerd secundair antilichaam. Eiwitbanden werden zichtbaar gemaakt met een ECL-chemiluminescentiereagens.
Statistische analyse
De gegevens werden geanalyseerd met behulp van SPSS 27.0. Alle waarden werden gerapporteerd als gemiddelde ± standaarddeviatie (SD), tenzij anders vermeld. De Shapiro-Wilk-toets werd gebruikt om de normale verdeling te toetsen. Onderlinge verschillen tussen de twee groepen werden bepaald met een ongepaarde tweezijdige Student'Een gepaarde Student's t-toets. De vergelijking van de miR-1298-expressie tussen CRC-tumorweefsels en aangrenzende niet-kwaadaardige weefsels werd uitgevoerd met behulp van een gepaarde Student's t-toets.'een t-test. Voordat de parametrische test werd uitgevoerd, werd de Levene-test gebruikt om de homogeniteit van varianties te beoordelen. Voor vergelijkingen tussen meerdere groepen werden parametrische gegevens geanalyseerd met een eenweg-ANOVA, met Tukey'De HSD-test van Tukey werd gebruikt voor post-hoc paarwijze vergelijkingen. De correlatie tussen miR-1298 en BMP7 in CRC-weefsels werd beoordeeld met behulp van Pearson's correlatieanalyse. p < 0,05 werd als statistisch significant beschouwd.
Resultaten
miR-1298 was aanzienlijk verlaagd bij CRC
In CRC-weefsels waren de miR-1298-niveaus lager dan in aangrenzende niet-kankeuze weefsels (Figuur 1A). Analyse van lymfekliermetastasen onthulde dat de miR-1298-niveaus lager waren bij patiënten met lymfekliermetastasen dan bij patiënten zonder lymfekliermetastasen (Figuur 1B). Bij patiënten met CRC met een tumoromvang > 5 cm was miR-1298 significant lager dan bij patiënten met een tumoromvang ≤ 5 cm (p = 0,017; Figuur 1C). miR-1298 nam af naarmate het tumorstadium vorderde, met significante verschillen tussen stadium 1 en stadium 3 (p = 0,047) en tussen stadium 1 en stadium 4 (p = 0,09; Figuur 1D). In het serum van patiënten met CRC was miR-1298 aanzienlijk verlaagd (Figuur 1E), en ROC-curveanalyse toonde een AUC van 0,89, met een sensitiviteit van 78,82% en een specificiteit van 83,10% (Figuur 1F).
Op basis van het mediane expressieniveau van miR-1298 werden patiënten met CRC verdeeld in groepen met een lage en hoge expressie. Bij patiënten met CRC was miR-1298 nauw verbonden met het TNM-stadium (p < 0,001), de tumorgrootte (p = 0,03), lymfekliermetastasen (p = 0,003) en tumordifferentiatie (p = 0,035). Echter was miR-1298 niet verbonden met leeftijd (p = 0,832) of geslacht (p = 0,165) (Tabel 1). De Kaplan-Meier-analyse toonde aan dat patiënten met CRC met een lage miR-1298-expressie een kortere algehele overleving hadden dan patiënten met een hoge miR-1298-expressie (log-rank p = 0,039; Figuur 1G). Cox-regressieanalyse wees uit dat een verminderde miR-1298-expressie een potentiële prognostische indicator kan zijn bij patiënten met CRC (p = 0,035, Tabel 2).
miR-1298 onderdrukte de proliferatie en bevorderde apoptose in CRC-cellen
In SW480-cellen veranderde transfectie met de miR-1298-mimic of -inhibitor de miR-1298-expressie effectief, met een significant verschil tussen de inhibitor NC- en de miR-1298-inhibitorgroepen (p = 0,005; Figuur 2A). Overexpressie van miR-1298 verminderde de celviabiliteit en bevorderde apoptose, terwijl onderdrukking van miR-1298 de celviabiliteit verhoogde en apoptose verminderde; apoptose verschilde significant tussen de inhibitor NC- en de miR-1298-inhibitorgroepen (p = 0,08; Figuur 2B,C). In HCT-16-cellen veranderde transfectie de miR-1298-expressie op soortgelijke wijze (p = 0,02; Figuur 2D), en er werden significante verschillen waargenomen tussen de inhibitor NC- en de miR-1298-inhibitorgroepen voor de celviabiliteit (p = 0,007; Figuur 2E) en apoptose (p = 0,05; Figuur 2F).
miR-1298 onderdrukte de migratie en invasie van CRC-cellen
Overexpressie van miR-1298 verminderde het aantal gemigreerde en invasieve SW480- en HCT-16-cellen, terwijl inhibitie van miR-1298 de celmigratie en -invasie verhoogde (Figuur 3A–D). In SW480-cellen was het aantal invasieve cellen aanzienlijk lager in de miR-1298-mimic-groep dan in de mimic NC-groep (p = 0,04; Figuur 3B).
BMP7 was een doelwit van miR-1298 in CRC
TargetScan gaf aan dat BMP7 mogelijk een doelwit is van miR-1298 (Figuur 4A). Dual-luciferase reporter-assays in SW480- en HCT-16-cellen toonden aan dat overexpressie of inhibitie van miR-1298 de luciferase-activiteit van de BMP7 Wt-reporter veranderde, maar niet die van de BMP7 Mut-reporter (Figuur 4B,C). In HCT-16-cellen was de luciferase-activiteit van de BMP7 Wt-reporter significant lager in de miR-1298 mimic-groep dan in de mimic NC-groep (p = 0,02; Figuur 4C). In CRC-weefsels was BMP7 aanzienlijk verhoogd (Figuur 4D). Bovendien vertoonden BMP7 en miR-1298 een negatieve correlatie (Figuur 4E). In SW480-cellen en HCT-16-cellen remde overexpressie van miR-1298 BMP7 op zowel RNA- als proteineniveau, terwijl inhibitie van miR-1298 leidde tot upregulatie van BMP7 (Figuur 4F,G).
miR-1298 kan een tumorsuppressief effect uitoefenen bij CRC via de regulatie van BMP7
In SW480-cellen werd de succesvolle modulatie van de BMP7-expressie bevestigd (Figuur 5A). Overexpressie van BMP7 keerde de afname in celviabiliteit en de toename in apoptose veroorzaakt door miR-1298-overexpressie gedeeltelijk om, terwijl knockdown van BMP7 de celviabiliteit verder verlaagde en de apoptose verhoogde (Figuur 5B,C). In HCT-16-cellen werd de succesvolle modulatie van de BMP7-expressie eveneens bevestigd (Figuur 5D), met overeenkomstige effecten op de celviabiliteit en apoptose (Figuur 5E,F). In SW480-cellen waren de BMP7-expressie en de celviabiliteit significant lager in de miR-1298 mimic + si-BMP7 groep dan in de miR-1298 mimic + si-NC groep (p = 0,02 en p = 0,05, respectievelijk; Figuur 5A,B). De apoptose verschilde significant tussen de miR-1298 mimic + OE-BMP7 en de miR-1298 mimic + OE-NC groepen (p = 0,01; Figuur 5C). In HCT-16-cellen was de celviabiliteit significant lager in de miR-1298 mimic + si-BMP7 groep dan in de miR-1298 mimic + si-NC groep (p = 0,002; Figuur 5E). Hoog tot expressie gebrachte BMP7 keerde de suppressieve effecten van miR-1298 op de migratie en invasie van CRC-cellen gedeeltelijk om, terwijl knockdown van BMP7 deze inhiberende effecten versterkte (Figuur 6A–D). In SW480-cellen verlaagde BMP7-knockdown het aantal gemigreerde en invasieve cellen significant in vergelijking met de si-NC groep (p = 0,03 en p = 0,020, respectievelijk; Figuur 6A,B). In HCT-16-cellen veranderde BMP7-overexpressie het aantal gemigreerde cellen significant in vergelijking met de OE-NC groep (p = 0,030; Figuur 6C), terwijl BMP7-knockdown het aantal invasieve cellen significant verlaagde in vergelijking met de si-NC groep (p = 0,07; Figuur 6D).
DATAbeschikbaarheid:
De gegevens ter ondersteuning van de bevindingen van deze studie worden verstrekt als een aanvullend bestand.
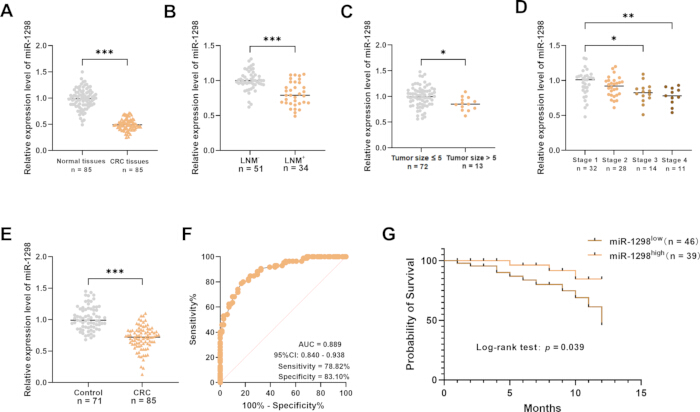
Figuur 1Expressie van miR-1298 in CRC-weefsels. (A) Relatieve expressie van miR-1298 in CRC-weefsels en aangrenzende niet-kankerous weefsels. (B) Relatieve expressie van miR-1298 in CRC-weefsels van patiënten met (LNM+) en zonder (LNM−) lymfekliermetastasen. (C) Relatieve expressie van miR-1298 in CRC-weefsels op basis van tumorgrootte. (D) Relatieve expressie van miR-1298 in CRC-weefsels naar tumorstadium. (E) Relatieve expressie van serum miR-1298 bij patiënten met CRC en gezonde controles. (F) Receiver operating characteristic (ROC)-curve voor serum miR-1298 bij het onderscheiden van patiënten met CRC van gezonde controles. (G) Kaplan-Meier-curves voor de algehele overleving van patiënten met CRC op basis van een lage en hoge miR-1298-expressie. *p < 0.05; **p < 0.01; ***p < 0.001. Klik hier om een grotere versie van deze figuur te bekijken.
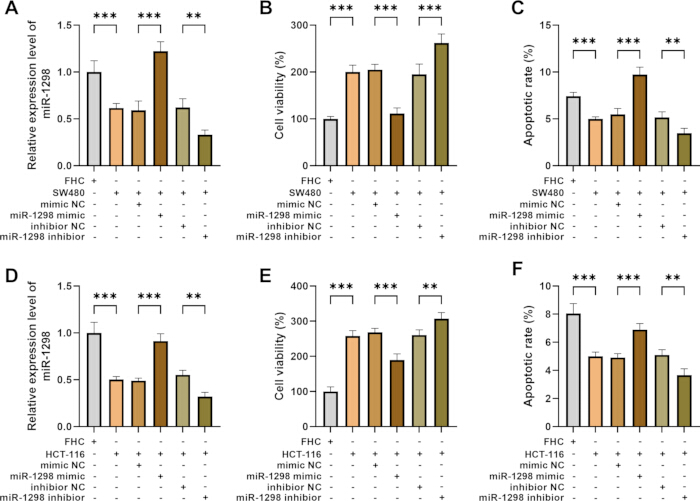
Figuur 2Effecten van miR-1298 op de proliferatie en apoptose van CRC-cellen. (A) Relatieve expressie van miR-1298 in FHC- en SW480-cellen na transfectie met miR-1298 mimic, mimic NC, miR-1298 inhibitor of inhibitor NC. (B) Cellevensvatbaarheid van SW480-cellen na overexpressie of inhibitie van miR-1298. (C) Apoptose van SW480-cellen na overexpressie of inhibitie van miR-1298. (D) Relatieve expressie van miR-1298 in FHC- en HCT-16-cellen na transfectie met miR-1298 mimic, mimic NC, miR-1298 inhibitor of inhibitor NC. (E) Celviabiliteit van HCT-16-cellen na overexpressie of inhibitie van miR-1298. (F) Apoptose van HCT-16-cellen na overexpressie of inhibitie van miR-1298. Gegevens worden weergegeven als gemiddelde ± SD. Foutbalken representeren de SD. **p < 0.01; ***p < 0.001. Klik hier om een grotere versie van deze figuur te bekijken.
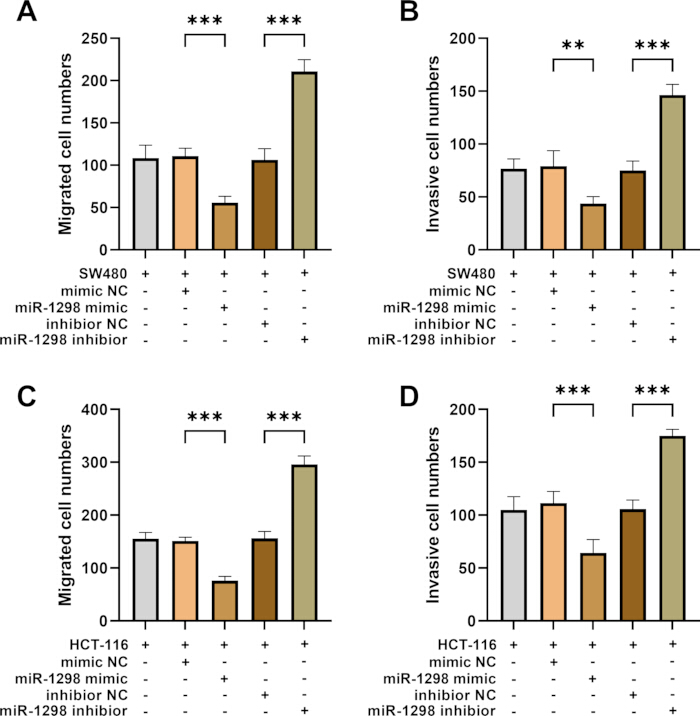
Figuur 3: Effecten van miR-1298 op de migratie en invasie van colorectaal carcinoom cellen (A) Aantal gemigreerde cellen in SW480-cellen na transfectie met miR-1298 mimic, mimic NC, miR-1298 inhibitor of inhibitor NC. (B) Aantallen invasieve cellen in SW480-cellen na transfectie met miR-1298 mimic, mimic NC, miR-1298 inhibitor of inhibitor NC. (C) Aantal gemigreerde cellen in HCT-16-cellen na transfectie met miR-1298-mimic, mimic NC, miR-1298-inhibitor of inhibitor NC. (D) Aantal invasieve cellen in HCT-16-cellen na transfectie met miR-1298 mimic, mimic NC, miR-1298 inhibitor of inhibitor NC. Gegevens worden gepresenteerd als gemiddelde ± SD. Foutbalken representeren de SD. **p < 0.01; ***p < 0.001. Klik hier om een grotere versie van deze figuur te bekijken.
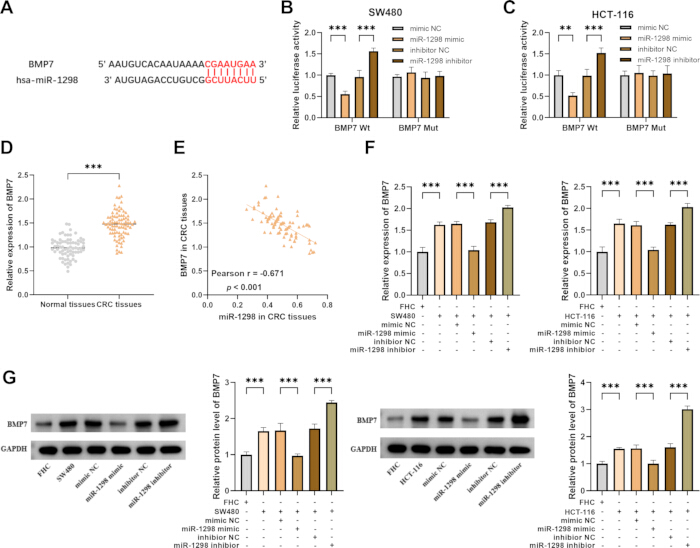
Figuur 4: Targeting van de relatie tussen miR-1298 en BMP7. (AVoorspelde bindingsplaats tussen miR-1298 en de BMP7 3′ UTR. (B) Relatieve luciferase-activiteit van BMP7 Wt- en BMP7 Mut-reporters na overexpressie of inhibitie van miR-1298 in SW480-cellen. (C) Relatieve luciferase-activiteit van BMP7 Wt- en BMP7 Mut-reporters na overexpressie of inhibitie van miR-1298 in HCT-16-cellen. (D) Relatieve expressie van BMP7 in CRC-weefsels en aangrenzende niet-kankerous weefsels. (E) Correlatie tussen miR-1298 en BMP7-expressie in CRC-weefsels. (F) Relatieve BMP7-expressie in SW480- en HCT-16-cellen na transfectie met miR-1298 mimic, mimic NC, miR-1298 inhibitor of inhibitor NC. (G) Relatieve BMP7-proteineniveaus in SW480- en HCT-16-cellen na transfectie met miR-1298 mimic, mimic NC, miR-1298 inhibitor of inhibitor NC. **p < 0.01; ***p < 0.001. Klik hier om een grotere versie van deze figuur te bekijken.
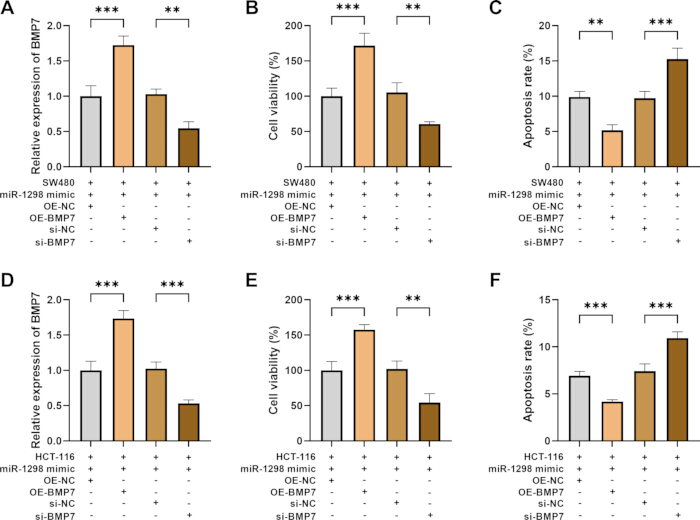
Figuur 5Co-regulatie van miR-1298 en BMP7 op proliferatie en apoptose in CRC-cellen. SW480- en HCT-16-cellen werden gecotransfecteerd met miR-1298 mimic en OE-NC, OE-BMP7, si-NC of si-BMP7.A) Relatieve BMP7-expressie in SW480-cellen. (B) Celviabiliteit in SW480-cellen. (C) Apoptose in SW480-cellen. (D) Relatieve BMP7-expressie in HCT-16-cellen. (E) Celviabiliteit in HCT-16-cellen. (F) Apoptose in HCT-16-cellen. Gegevens worden weergegeven als gemiddelde ± SD. Foutenbalken representeren SD. **p < 0.01; ***p < 0.01. Afkortingen: OE-NC = negatieve controle voor overexpressie; OE-BMP7 = BMP7-overexpressie; si-NC = negatieve controle voor small interfering RNA; si-BMP7 = BMP7-gericht small interfering RNA. Klik hier om een grotere versie van deze figuur te bekijken.
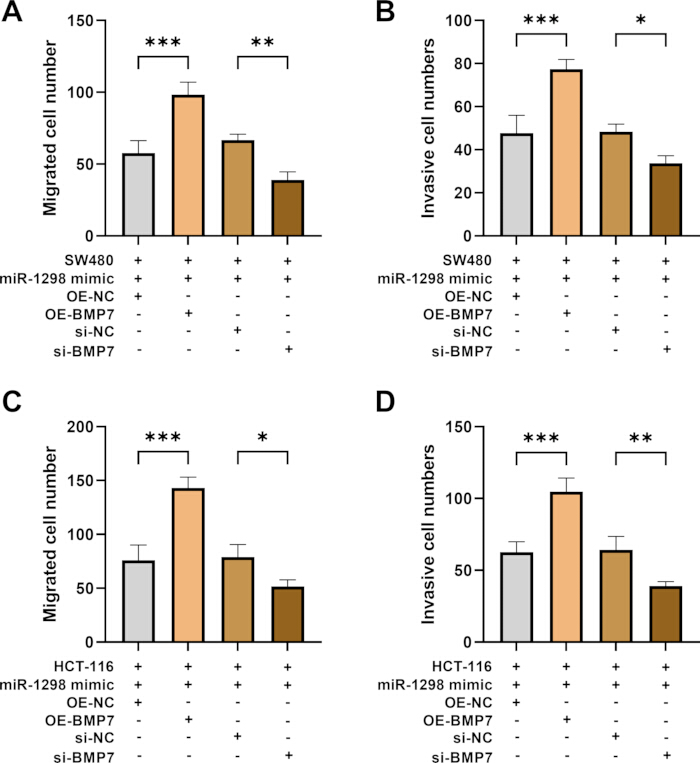
Figuur 6Co-regulatie van miR-1298 en BMP7 op de migratie en invasie van CRC-cellen. SW480- en HCT-16-cellen werden gecotransfecteerd met miR-1298 mimic en OE-NC, OE-BMP7, si-NC of si-BMP7.A) Aantal gemigreerde cellen in SW480-cellen. (B) Aantal invasieve cellen in SW480-cellen. (C) Aantal gemigreerde cellen in HCT-16-cellen. (D) Aantal invasieve cellen in HCT-116-cellen. Gegevens worden weergegeven als gemiddelde ± SD. Foutbalken representeren de SD. *p < 0.05; **p < 0.01; ***p < 0.01. Afkortingen: OE-NC = overexpression negatieve controle; OE-BMP7 = BMP7-overexpressie; si-NC = small interfering RNA negatieve controle; si-BMP7 = BMP7-targeterend small interfering RNA. Klik hier om een grotere versie van deze figuur te bekijken.
| Variabele | Totaal | miR-1298 | p-waarde | |
| (n = 85) | Laag (n = 46) | Hoog (n = 39) | ||
| Leeftijd (jaar) | ||||
| ≤50 | 49 | 27 | 2 | 0.832 |
| >50 | 36 | 19 | 17 | |
| Geslacht (man/vrouw) | ||||
| Man | 4 | 27 | 17 | 0.165 |
| Vrouw | 41 | 19 | 2 | |
| TNM-stadium | ||||
| 1–2 | 60 | 41 | 19 | <0.01*** |
| 3–4 | 25 | 5 | 20 | |
| Tumorgrootte (cm) | ||||
| ≤5 | 72 | 34 | 38 | 0.03** |
| >5 | 13 | 12 | 1 | |
| Lymfekliermetastase | ||||
| Ja | 34 | 25 | 9 | 0.03** |
| Nee | 51 | 21 | 30 | |
| Tumordifferentiatie | ||||
| Laaggradig | 53 | 24 | 29 | 0.035* |
| Hooggradig | 32 | 2 | 10 | |
Tabel 1: Associatie tussen clinicopathologische kenmerken en miR-1298 expressieniveaus bij patiënten met CRC. Patiënten werden gecategoriseerd in groepen met een lage (n = 46) en hoge (n = 39) miR-1298 expressie, waarna de associaties tussen de miR-1298 expressie en clinicopathologische kenmerken werden geëvalueerd. *p < 0,05; **p < 0,01; ***p < 0,01. Afkortingen: CRC = colorectale kanker; TNM = tumor node metastasis.
| Variabele | Hazardratio | 95% BI | p waarde | |
| Verlagen | Bovenste | |||
| Leeftijd | 0.776 | 0.186 | 3.242 | 0.728 |
| Geslacht | 0.614 | 0.152 | 2.474 | 0.492 |
| TNM-stadium | 4.62 | 1.181 | 18.078 | 0.028* |
| Tumorgrootte | 8.078 | 1.833 | 35.587 | 0.006** |
| Lymfekliermetastase | 6.584 | 1.134 | 38.245 | 0.036* |
| Tumordifferentiatie | 6.392 | 1.748 | 23.377 | 0.005** |
| miR-1298 | 0.145 | 0.024 | 0.87 | 0.035* |
Tabel 2: Cox-regressieanalyse van prognostische factoren bij patiënten met CRC. Een Cox-regressieanalyse werd uitgevoerd om de associatie van clinicopathologische kenmerken en miR-1298-expressie met de prognose bij patiënten met CRC te evalueren. *p < 0,05; **p< 0,01. Afkortingen: CI = betrouwbaarheidsinterval; CRC = colorectaal carcinoom; TNM = tumor node metastasis.
Aanvullend bestand. Klik hier om dit bestand te downloaden.
Discussie
CRC vormt een aanzienlijke last voor individuen en de samenleving vanwege de hoge incidentie en de hoge mortaliteitscijfers. Ondanks screeningsprogramma's zoals coloscopie worden een groot aantal CRC-patiënten nog steeds in een gevorderd stadium gediagnosticeerd, wat de dringende behoefte aan effectievere, niet-invasieve biomarkers voor vroege detectie onderstreept1. Bovendien blijft de prognose van metastatische CRC slecht, waarbij geneesmiddelenresistentie en recidieven van de ziekte relatief veel voorkomen12. Daarom is een grondig begrip van de moleculaire mechanismen die ten grondslag liggen aan het ontstaan, de progressie en de metastase van CRC essentieel voor de ontwikkeling van nieuwe doelgerichte therapieën en het overwinnen van behandelresistentie. CRC is zeer heterogeen, wat betekent dat tumoren die vergelijkbaar lijken, aanzienlijke verschillen in gedrag kunnen vertonen13. Doorlopend onderzoek is daarom belangrijk voor het verbeteren van de vroege detectie, het bevorderen van gepersonaliseerde behandeling en uiteindelijk het verbeteren van de overleving bij patiënten met CRC.
Afwijkingen in miRNA zijn betrokken bij de ontwikkeling, stadiering en prognose van CRC14. Vanwege hun stabiliteit in lichaamsvloeistoffen hebben miRNA's ook een groot potentieel als niet-invasieve diagnostische en prognostische biomarkers15. In deze studie was miR-1298 downgereguleerd in CRC-weefsels, en was de expressie ervan geassocieerd met het TNM-stadium en lymfekliermetastasen, wat wijst op een potentiële rol bij de progressie van CRC. Opmerkelijk is dat onze studie de eerste is die de expressie van miR-1298 uitgebreid karakteriseert in een klinische CRC-cohort en de associatie ervan aantoont met belangrijke clinicopathologische parameters, waaronder het TNM-stadium, lymfekliermetastasen en tumordifferentiatie.
Dysregulatie van fundamentele cellulaire processen—waaronder proliferatie, apoptose, migratie en invasie—is een fundamentele drijver van kankerontwikkeling en mortaliteit16. Ongecontroleerde proliferatie stelt tumorcellen in staat om een initiële clonale expansie te ondergaan. Tegelijkertijd zorgt het vermijden van apoptose ervoor dat deze cellen kunnen overleven en zich kunnen ophopen ondanks interne schade of externe stressfactoren. Deze combinatie leidt tot de groei van de primaire tumor17,18. Daarom zijn gerichte therapieën die zich richten op de moleculaire drijvers van deze kenmerken essentieel voor de ontwikkeling van effectieve behandelingen voor CRC. miRNA's dragen bij aan tumorontwikkeling door het maligne fenotype van kankercellen te reguleren19. miR-1298 is een dergelijke miRNA. Zo bevordert downregulatie van miR-1298-5p de progressie van maagkanker20. Geupreguleerde miR-1298 onderdrukt de proliferatie van borstkankercellen, induceert apoptose en veroorzaakt een celcyclusstop21. Daarnaast fungeert miR-1298-5p ook als tumorsuppressor bij blaaskanker2. De resultaten van deze studie gaven aan dat overexpressie van miR-1298 de proliferatie, migratie en invasie onderdrukte en de apoptose verhoogde, wat suggereert dat het het maligne fenotype van CRC kan onderdrukken. Belangrijk is dat onze studie verder ging dan eerdere rapporten door systematisch belangrijke maligne fenotypes in CRC-cellen te evalueren, waardoor een completere functionele karakterisering van miR-1298 in dit specifieke kankertype werd geboden.
Wat betreft de tumorbevorderende effecten kan BMP7 de proliferatie van kankercellen stimuleren door signaalpaden zoals PI3K/AKT te reguleren23. Door het niveau van anti-apoptotische factoren zoals Bcl‑2 te moduleren, verleent BMP7 resistentie tegen apoptose in kankercellen24. Daarnaast bevordert BMP7 primair de migratie en invasie van kankercellen door epitheliale-mesenchymale transitie (EMT) te induceren25. De betrokkenheid van BMP7 bij het bevorderen van kanker is consistent met onze bevinding dat BMP7 verhoogd was in CRC-weefsel. Bio-informatica-analyse suggereerde dat BMP7 een target zou kunnen zijn van miR-1298 en identificeerde een voorspelde bindingsplaats tussen miR-1298 en BMP7. Bovendien gaven rescue-experimenten aan dat BMP7 waarschijnlijk fungeerde als een functionele mediator van miR-1298 in CRC. Gezien de signaalpaden die geassocieerd zijn met BMP7 in kanker, hypothetiseerden we verder dat de miR-1298/BMP7-as de downstream signaalpaden (SMAD, PI3K/AKT, EMT) reguleert die het gedrag van CRC-cellen beheersen. Cruciaal is dat we deze voorspelling experimenteel hebben gevalideerd via luciferase-reporterassays, waarmee de directe binding van miR-1298 aan de 3′ UTR van BMP7 is bevestigd. Verder toonden rescue-experimenten aan dat het herstel van BMP7 de tumorsuppressieve effecten van miR-1298-overexpressie gedeeltelijk tenietdeed, wat functioneel bewijs levert dat BMP7 een downstream mediator was van miR-1298 in CRC. Voor zover ons bekend is dit de eerste studie die de miR-1298/BMP7-regulatieve as in colorectale kanker vaststelt.
Naast mechanistische inzichten leverde onze studie translationeel bewijs dat het klinische nut van miR-1298 ondersteunt. ROC-curve-analyse toonde aan dat miR-1298 diagnostische waarde kan hebben bij CRC. Overlevingsanalyse onthulde verder dat een lage expressie van miR-1298 gekoppeld was aan een slechtere prognose, en Cox-regressieanalyse wees uit dat een vermindering van miR-1298 een prognostische factor voor CRC kan zijn, wat de latente waarde van miR-1298 als diagnostische en prognostische biomarker voor CRC ondersteunt.
Deze studie kent enkele beperkingen. Wat betreft de klinische monsters zijn, omdat deze studie primair gebruikmaakte van gegevens uit één centrum, toekomstige multicenter-validatiestudies nodig om de tumorsuppressieve rol van miR-1298 in CRC robuuster te bevestigen. Deze studie richtte zich op in vitro cellulaire experimenten, die de complexiteit van de in vivo tumormicro-omgeving niet volledig konden vatten. Het ontbreken van xenograft-tumormodellen was een van de beperkingen van deze studie. Toekomstig onderzoek zou in vivo validatie moeten bevatten om de rol van de miR-1298/BMP7-as in de tumormicro-omgeving verder te verduidelijken. Daarnaast kunnen toekomstige experimenten de upstream- en downstream-paden van de miR-1298/BMP7-as verder valideren via bio-informatische voorspellingen en in vitro en in vivo experimenten. De follow-upperiode was relatief kort, wat de betrouwbaarheid van de schatting van de langetermijnoverleving beperkte. Hoewel Kaplan-Meier- en Cox-regressieanalyses zijn uitgevoerd, kunnen de resultaten beïnvloed zijn door deze relatief korte follow-upperiode. Er is momenteel een verlengde follow-up gaande om de prognostische waarde van miR-1298 in CRC te verifiëren. Bovendien zijn de downstream-signaalpaden (SMAD, PI3K/AKT, EMT) die door de miR-1298/BMP7-as worden gereguleerd bij het beheersen van het gedrag van CRC-cellen in deze studie niet experimenteel geverifieerd en vereisen zij verdere exploratie. In deze studie zijn geen reverse rescue-experimenten (miR-1298-inhibitor + BMP7 siRNA) uitgevoerd. Dergelijke experimenten zouden complementair bewijs leveren voor de vraag of BMP7-knockdown de tumorbevorderende effecten van miR-1298-inhibitie kon omkeren. De afwezigheid van dit type rescue-experiment verzwakt onze mechanistische conclusies. Toekomstige studies die dit reverse rescue-experimentele ontwerp en in vivo validatie integreren, zijn nodig om de functie van de miR-1298/BMP7-as in CRC volledig vast te stellen.
Samenvattend zou miR-1298 gekoppeld kunnen zijn aan de progressie van CRC. Functioneel gezien kan miR-1298 de proliferatie, invasie en migratie van CRC-cellen remmen. BMP7 zou een potentiële functionele mediator van miR-1298 in CRC kunnen zijn.
Openbaarmakingen
De auteurs hebben geen relevante financiële of niet-financiële belangen te melden.
Dankbetuigingen
De auteurs verklaren dat er geen fondsen, subsidies of andere ondersteuning zijn ontvangen tijdens de voorbereiding van dit manuscript.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0,1% kristalvioletoplossing | Sigma-Aldrich | C075 | |
| 10% SDS-PAGE Kit | Epizyme | PG12 | |
| 4% paraformaldehyde | Sigma-Aldrich | P6148 | |
| 6-wells celkweekplaat | Corning | 3516 | |
| 96-wells celkweekplaat | Corning | 359 | |
| Annexin V-FITC/PI Apoptosis Detection Kit | Various (e.g., Elabscience, BD Biosciences) | E-CK-A211 (Elabscience) or 56547 (BD) | |
| Anti-BMP7 | Abcam | ab176707 | |
| Anti-GAPDH | Abcam | ab181602 | |
| BCA Kit | Sangon | C503021 | |
| BMP7 Mutant 3‘-UTR reporterplasmide | Custom constructed (cloned into pmirGLO) | Custom | |
| BMP7 primers | Sangon Biotech (Shanghai, China) | Custom synthesis | |
| BMP7 Wild-type 3‘-UTR reporterplasmide | Custom constructed (cloned into pmirGLO) | Custom | |
| Cell Counting Kit-8 (CCK-8) | Dojindo (Japan) | CK04 | |
| Celkweekfles (T-25) | Corning | 430639 | |
| DMEM (Dulbecco‘s Modified Eagle Medium) | Invitrogen (Thermo Fisher Scientific) | 1195065 | |
| Foetaal runderserum (FBS) | Invitrogen (Thermo Fisher Scientific) | 1614071 | |
| FHC cellijn (normaal menselijk colon-epitheel) | ATCC | CRL-1831 | |
| Flowcytometer | BD Biosciences | FACSCanto™ II | |
| FlowJo V10 software | FlowJo, LLC | — | |
| GAPDH primers (endogene controle voor mRNA) | Sangon Biotech (Shanghai, China) | Custom synthesis | |
| HCT-16 cellijn (menselijk colorectaal carcinoom) | ATCC | CCL-247 | |
| HRP-geconjugeerd secundair antilichaam | Beyotime | A0208 | |
| Omgekeerde microscoop | Nikon (or equivalent) | Eclipse Ts2 | |
| Lipofectamin 300 Transfectie-reagens | Invitrogen (Thermo Fisher Scientific) | L30015 | |
| Luciferase Assay System | Promega | E150 | |
| Matrigel Basement Membrane Matrix | Corning | 354230 | |
| Microplaatlezer | BioTek (Agilent) | Synergy H1 | |
| miR-1298 inhibitor | GenePharma (Shanghai, China) | Custom (synthesized upon order) | |
| miR-1298 mimic | GenePharma (Shanghai, China) | Custom (synthesized upon order) | |
| miR-1298 primers | Sangon Biotech (Shanghai, China) | Custom synthesis | |
| Mir-X miRNA First-Strand Synthesis Kit | Takara Bio | 638313 | |
| OE-NC | GenePharma (Shanghai, China) | Custom (synthesized upon order) | |
| Opti-MEM | Gibco | 31985070 | |
| Passieve lysisbuffer | Promega | E194A | |
| pcDNA3.1 vector (leeg vectorcontrole) | Invitrogen (Thermo Fisher Scientific) | V79020 | |
| pcDNA3.1-BMP7 (OE-BMP7 overexpressieplasmide) | GenePharma (Shanghai, China) | Custom (synthesized upon order) | |
| pmirGLO Dual-Luciferase miRNA Target Expression Vector | Promega | E130 | |
| PMSF | Beyotime | ST506 | |
| PrimeScript RT Reagent Kit (Perfect Real Time) | Takara (Japan) | RR037A | |
| PrimeScript RT reagent Kit with gDNA Eraser | Takara Bio | RR047A | |
| Proteaseremmercocktail | Thermo | 78429 | |
| PVDF | Absin | abs935 | |
| RIPA | Abcam | ab156034 | |
| RNase-vrije microcentrifugebuisjes (1,5 mL) | Axygen (Corning) | MCT-150-C | |
| RNase-vrije pipetpunten | Axygen (Corning) | T-30 (10 µL), T-20-Y (20 µL), T-10-B (10 µL) | |
| si-BMP7 | GenePharma (Shanghai, China) | Custom (synthesized upon order) | |
| si-NC | GenePharma (Shanghai, China) | Custom (synthesized upon order) | |
| Staurosporine (apoptose positieve controle) | Sigma-Aldrich | S5921 | |
| SW480 cellijn (menselijk colorectaal adenocarcinoom) | ATCC | CCL-28 | |
| SYBR Green qPCR Master Mix | Takara (Japan) | RR036A | |
| Transwell-kamer (24-wells, 8,0 µm poriegrootte) | Corning (Costar) | 342 | |
| TRIzol Reagens | Invitrogen (Thermo Fisher Scientific) | 1596026 | |
| U6 primers (endogene controle voor miRNA) | Sangon Biotech (Shanghai, China) | Custom synthesis |
Referenties
- Ali EAM, Altaie AM, Talaat IM, Hamoudi R. Putative role of Tie2-expressing monocytes/macrophages in colorectal cancer progression through enhancement of angiogenesis and metastasis. Cancers (Basel). 2025;17(17):2856.
- Golfinopoulou R, Hatziagapiou K, Mavrikou S, Kintzios S. Unveiling colorectal cancer biomarkers: harnessing biosensor technology for volatile organic compound detection. Sensors (Basel). 2024;24(14):4712.
- Islind AS, et al. Individualized blended care for patients with colorectal cancer: the patient's view on informational support. Support Care Cancer. 2021;29(6):3061-67.
- Sun Y, et al. IGF2BP3 enhances ferroptosis resistance in colon cancer by stabilizing SLC7A11 and is regulated by miR-98-5p. Front Oncol. 2025;15:1576895.
- Du Z, et al. MicroRNA-1298 is downregulated in non-small cell lung cancer and suppresses tumor progression in tumor cells. Diagn Pathol. 2019;14(1):132.
- Qi Y, et al. The dual role of glioma exosomal microRNAs: glioma eliminates tumor suppressor miR-1298-5p via exosomes to promote immunosuppressive effects of MDSCs. Cell Death Dis. 2022;13(5):426.
- Vasan R, et al. High BMP7 expression is associated with poor prognosis in ovarian cancer. J Cell Mol Med. 2023;27(21):3378-87.
- Motoyama K, et al. Clinical significance of BMP7 in human colorectal cancer. Ann Surg Oncol. 2008;15(5):1530-37.
- Shi Q, et al. Analysis of the role of the BMP7-Smad4-Id2 signaling pathway in SW480 colorectal carcinoma cells. Mol Med Rep. 2011;4(4):627-31.
- Yang YR, et al. MicroRNA-137 inhibits cell migration and invasion by targeting bone morphogenetic protein-7 (BMP7) in non-small cell lung cancer cells. Int J Clin Exp Pathol. 2015;8(9):10847-53.
- Yan T, et al. Oxidative stress gene expression in ulcerative colitis: implications for colon cancer biomarker discovery. Sci Rep. 2025;15(1):22641.
- Zhou Y, et al. Interleukin-17F suppressed colon cancer by enhancing caspase 4 mediated pyroptosis of endothelial cells. Sci Rep. 2024;14(1):18363.
- Ku X, et al. In-depth characterization of mass spectrometry-based proteomic profiles revealed novel signature proteins associated with liver metastatic colorectal cancers. Anal Cell Pathol (Amst). 2019;2019:7653230.
- Wang Y, et al. Overexpression of microRNA-216a inhibits autophagy by targeting regulated MAP1S in colorectal cancer. Onco Targets Ther. 2019;12:4621-29.
- Correa-Gallego C, et al. Circulating plasma levels of microRNA-21 and microRNA-221 are potential diagnostic markers for primary intrahepatic cholangiocarcinoma. PLoS One. 2016;11(9):e0163699.
- Qin Y, Zhou Y. Heterogeneous nuclear ribonucleoprotein K in cancer biology and its therapeutic applications (review). Mol Med Rep. 2026;33(5):144.
- Louis L, Chee BS, McAfee M, Nugent M. Electrospun drug-loaded and gene-loaded nanofibres: the holy grail of glioblastoma therapy? Pharmaceutics. 2023;15(6):1649.
- Termini D, Den Hartogh DJ, Jaglanian A, Tsiani E. Curcumin against prostate cancer: current evidence. Biomolecules. 2020;10(11):1536.
- Wu SR, Wu Q, Shi YQ. Recent advances of miRNAs in the development and clinical application of gastric cancer. Chin Med J (Engl). 2020;133(15):1856-67.
- Li X, et al. MiR-1298-5p level downregulation induced by Helicobacter pylori infection inhibits autophagy and promotes gastric cancer development by targeting MAP2K6. Cell Signal. 2022;93:110286.
- Chen W, et al. microRNA-1298 inhibits the malignant behaviors of breast cancer cells via targeting ADAM9. Biosci Rep. 2020;40(12):BSR20201215.
- Zhang X, et al. Circular RNA TAF4B promotes bladder cancer progression by sponging miR-1298-5p and regulating TGFA expression. Front Oncol. 2021;11:643362.
- Leinhauser I, et al. Oncogenic features of the bone morphogenic protein 7 (BMP7) in pheochromocytoma. Oncotarget. 2015;6(36):39111-26.
- Guan J, et al. Bone morphogenetic protein-7 (BMP-7) mediates ischemic preconditioning-induced ischemic tolerance via attenuating apoptosis in rat brain. Biochem Biophys Res Commun. 2013;441(3):560-66.
- Lim M, Chuong CM, Roy-Burman P. PI3K, Erk signaling in BMP7-induced epithelial-mesenchymal transition (EMT) of PC-3 prostate cancer cells in 2- and 3-dimensional cultures. Horm Cancer. 2011;2(5):298-309.