Dit protocol visualiseert de depositie van lignine en pectine-celwandcomponenten in dwarsneden van alfalfestengels (Medicago sativa L.). Het doel is om specifieke weefsels van de stengel te identificeren die als doelwit kunnen dienen voor de ontwikkeling van nieuwe alfalfelijnen met gewenste kenmerken voor de verteerbaarheid van de stengel.
Methodenartikel
In vitro-incubatie met rumenvocht en histologische kleuring van geselecteerde celwandcomponenten in stengels van alfalfa (Medicago sativa L.)
In dit artikel
Samenvatting
Samenvatting
De accumulatie van celwandcomponenten tijdens de groei van planten beperkt de voeding uit ruwvoer voor herkauwers. In het bijzonder belemmert de afzetting van lignine in planteweefsels de afbraak van de celwandkoolhydraten cellulose en hemicellulose, waardoor de hoeveelheid beschikbare energie uit het voer afneemt. De zeer goed verteerbare pectinecomponent van de celwand is echter wel gemakkelijk afbreekbaar. Informatie over de afzetting van lignine en pectine in verschillende stamseltypen kan mechanistische inzichten bieden in de factoren die ten grond liggen aan variaties in de verteerbaarheid van stengels tussen verschillende luzernelinjes. In vitro incubatie van stamdwarsoversecties in rumenvocht simuleert de processen waar stengeweefsels in de pens worden onderworpen. In combinatie met histologische kleuring en microscopie maakt deze methode het mogelijk om veranderingen in weefsafbraak in de loop van de tijd en de lokalisatie van lignine en pectine in de stengel te visualiseren. De Wiesner-kleuring reageert met guaiacyl (G) aldehyde-eenheden van lignine, die fuchsia worden gekleurd. Op soortgelijke wijze reageert rutheniumrood met de carboxylgroepen van pectine, waardoor pectine in de stengel wordt gekleurd in tinten variërend van roze tot oranje en bruin. Dit protocol beschrijft de digestie van dwarsdoorsneden van luzernestengels na blootstelling aan rumenmicroben, gevolgd door kleuring om lignine- en pectinepatronen in de celwanden te visualiseren. De methode kan worden gebruikt om stengeweefsels te identificeren waarin lignine en pectine aanwezig of afwezig zijn, wat vergelijkingen tussen luzernelinjes vergemakkeligt.
Inleiding
Elke plantencel wordt omsloten door een celwand. Cellulose, hemicellulose, lignine en pectine zijn componenten van de celwand en dragen bij aan plantvezels, een essentieel onderdeel van het dieet van herkauwers. Hoewel pectinenen zeer goed verteerbare (oplosbare) polysachariden zijn1, is lignine een onverteerbaar polymeer dat de afbraak van vezels beperkt2. Lignine vermindert daarom de verteerbaarheid van de plant en verlaagt uiteindelijk de energie die voor de herkauwer uit ruwvoer beschikbaar is. Lignine ondersteunt echter belangrijke plantenfysiologische functies, zoals het transport van water door de plant door het versterken van tracheïde-elementen3. Eerder onderzoek heeft aangetoond dat veranderingen in stengelvezels die de hoeveelheid lignine verminderen of de hoeveelheid pectine verhogen, de verteerbaarheid van de stengel en de voedingswaarde van het ruwvoer kunnen verbeteren4. Daarom richt dit protocol zich op deze twee celwandcomponenten. Totale concentraties lignine en pectine in de celwand van de stengel bieden onvoldoende informatie om de mechanismen achter de verteerbaarheid van stengelvezels te verklaren5. In vitro incubatie met rumenvocht en histologische kleuring kunnen inzicht bieden op cellulair niveau door verschillen in celwandcomponenten te visualiseren tussen planten met een variërende verteerbaarheid van de stengelvezels4,6. In het huidige protocol dient alfalfa (Medicago sativa L.), een veelvoorkomende overblijvende voeder vlinderbloemige, als modelsoort om patronen van lignine en pectine in stengelweefsels te illustreren, die meer lignine maar minder pectine bevatten dan bladeren.
In vitro incubatie met rumenvocht simuleert de vertering van ruwvoer in de maag van herkauwers, waardoor de effecten van de anatomie van het ruwvoer op de verteerbaarheid kunnen worden waargenomen. Door in een reageerbuis condities te creëren die vergelijkbaar zijn met die in de pens, kunnen aan glazen objectglaasjes gehechte dwarsdoorsneden van stengels op verschillende tijdstippen worden verwijderd om de graad van weefselafbraak na blootstelling aan rumenvocht te beoordelen6. Deze methode biedt een relatief eenvoudige, snelle en goedkope benadering voor het visualiseren van de anatomische structuren van alfalfestengels7 en het onderzoeken van hoe celtypen met verschillende celwandcomponenten veranderen naarmate de stengel wordt verteerd.
Histologische kleuring van dwarsdoorsneden van stengels maakt visualisatie van celwandcomponenten mogelijk. Phloroglucinol en zoutzuur (HCl) vormen samen de Wiesner-kleuring, die stengelweefsels met guaiacyl-rijke lignine-eenheden8 markeert door te reageren met G C6C3 aldehyd (coniferaldehyde) monomeren9. Lignine bestaat uit meerdere monomeereenheden; in dit artikel verwijst de term “lignine” echter uitsluitend naar het G-unit monomeer, aangezien dit het monomeer is dat reageert met de Wiesner-kleuring10 en daarom via dit protocol wordt gevisualiseerd. Sommige weefsels, zoals xylemvaten, zijn altijd verhout6. Anders begint de lignineafzetting in stengelweefsels van luzerne zodra de secundaire (cambiale) groei start, wat samenvalt met het stoppen van de verlenging van de stengelinternodia6. Rutheniumrood bindt aan pectines, die carboxylgroepen bevatten die soms geësterificeerd zijn en enkele zijketens delen11. De carboxylgroepen van pectines in de middenlamel en de primaire celwanden reageren met rutheniumrood11. Pectine is betrokken bij celverlenging en is daarom aanwezig in cellen tijdens de primaire groei. In dit manuscript verwijst de term “pectine” algemeen naar de verzameling pectines die aanwezig kunnen zijn. Het combineren van histologische kleuring met rumen in vitro incubatie vergemakkelijkt de observatie van de locatie van celwandcomponenten in de stengel en laat zien hoe verschillende celtypen veranderen tijdens de ruminale vertering. Uiteindelijk kan dit protocol worden gebruikt om stengellcellen die lignine en pectine bevatten te identificeren en om patronen over verschillende luzernelijnen en incubatietijden te karakteriseren.
Protocol
Dit onderzoek is uitgevoerd in overeenstemming met de institutionele richtlijnen voor proefdieren (IACUC 2301-40689B).
1. Labelen van monsterbuisjes
- Voorbereiding en etikettering van monsterbuizen voor incubatie, opslag en kleuring
- Label vooraf vijf afzonderlijke sets wegwerpbuisjes met schroefdop (conische centrifugeerbuizen van 50 mL) voor elk monster. Voeg de monsteridentificatie en de incubatietijd toe aan elke buis voor de hieronder beschreven toepassingen.
- Label de buizen voor de wachtperiode vóór de incubatie en voeg 35 mL ultrapuur water toe.
- Label de incubatiebuizen voor gebruik in Sectie 3 en 4. Organiseer de buizen in afzonderlijke rekjes per incubatietijd (0, 4, 8, 24, 48 of 96 h).
OPMERKING: Gebruik een permanente marker van industriële kwaliteit om te voorkomen dat de labels in het waterbad wegspoelen. - Label de bewaarbuizen voor na de incubatie en voeg 35 mL van een 50:50 mengsel van 100% glycerol en ultrapuur water toe. Gebruik deze buizen om gedigesteerde dwarsdoorsneden op glaasjes te bewaren tot aan de kleuring.
- Label de buizen voor vóór de kleuring en voeg 35 mL van een 50:50 mengsel van 200-proof ethanol en ultrapuur water toe. Gebruik deze buizen om glycerol uit de dwarsdoorsneden te extraheren vóór de kleuring.
- Label de hydratatiebuizen en voeg 35 mL ultrapuur water toe.
2. Dwarsdoorsnijden van de stengel en monteren op objectglazen
- Select met een pincet één stengsegment tegelijk uit de monsterstengels en snijd het centrum van het segment uit.
OPMERKING: Gebruik vier stengels per monster als technische replica's voor elke biologische replica. Selecteer de vier stengels willekeurig uit alle beschikbare stengels per monster. Gebruik een extra set standaardstengels als controle voor alle incubatieronden. - Snijd twee rechthoeken van geëxtrudeerd polystyreen hard schuimisolatie, elk ongeveer 2,5 cm lang en 0,6 cm dik. Snijd langs de lengte van elk stuk een klein wigje, zodat een stengelinternodium nauwsluitend tussen de twee stukken schuim past.
- Monteer de stengel-"sandwich" op de tafel van een schuifmicrotoom die in staat is om coupes van 100 μm dik te maken. Breng met een fijngepenseeld penseel een druppel water aan op de stengel en het mes van de microtoom om een schone doorsnijding te vergemakkelijken.
- Snijd dwarsdoorsneden van de stengel met een dikte van 100 μm. Gebruik het penseel om elke dwarsdoorsnede over te brengen naar een vooraf gelabelde Petrischaal met ultrapuur water voor tijdelijke bewaring, en verwijder eventueel schuim uit de schaal.
OPMERKING: Vervang het mes van de microtoom als het schuim scheurt, aangezien scheuren kan wijzen op een bot mes. - Label handmatig twee standaard glazen objectglazen van 25 mm × 75 mm voor elk monster bij elk incubatietijdstip (2 kleuringen × 6 tijdspunten = 12 objectglazen per monster voor elk van de biologische replica's). Vermeld de monsteridentificatie, de incubatietijd en de kleuring op elk label.
- Snijd een stukje dubbelzijdige tape van 2 mm breed en 2,5 cm lang. Positioneer de korte zijde van de tape 0,5 cm vanaf de onderkant van het objectglas, met de plakzijde naar beneden, en druk met handschoenen aan op de zijde met het vetvrij papier om hechting te garanderen.
OPMERKING: Voer deze stap uit op een vlak oppervlak om breuk van de objectglazen te voorkomen. - Gebruik een dissectiemicroscoop om alle dwarsdoorsneden in dezelfde richting te oriënteren. Verwijder het vetvrij papier van de dubbelzijdige tape en breng, terwijl de oriëntatie van de dwarsdoorsneden behouden blijft, deze met een bevochtigd, fijngepenseeld penseel over naar de tape op het vooraf gelabelde objectglas. Houd de dwarsdoorsneden licht vochtig.
- Plaats het vetvrij papier over de dwarsdoorsneden en rol het penseel er licht overheen om de dwarsdoorsneden stevig op de dubbelzijdige tape te bevestigen. Verwijder het vetvrij papier en plaats het gemonteerde objectglas met vier dwarsdoorsneden in de vooraf gelabelde bewaarbuis zoals beschreven in stap 1.1.2, waarbij u er zeker van bent dat het ultrapure water de gemonteerde dwarsdoorsneden bedekt.
- Voor kleuring met zowel rutheniumrood als Wiesner-kleuring: plaats twee objectglazen rug aan rug in elke bewaarbuis, met de dubbelzijdige tape naar buiten gericht.
OPMERKING: Sla de objectglazen, indien nodig, overnacht bij kamertemperatuur op nadat alle glazen zijn gemonteerd en in buizen met ultrapuur water zijn geplaatst.
3. Voorbereiding voor in vitro incubatie van dwarsneden van de stengel
- Gebruik de wegwerpbuisjes voor centrifugatie van 50 mL met schroefdop die zijn voorbereid voor incubatie (zie 1.1.3). Groepeer alle monsterbuisjes voor elk incubatie-interval op één plastic rek.
- Gebruik een analytische balans met vier decimalen om 0,2 g van een standaard van 1 mm gemalen maïsstengel op weegpapier af te wegen en breng het materiaal zorgvuldig over in elk incubatiebuisje, behalve in de 0 u buisjes, die dienen als niet-geincubeerde controle. Sluit de buisjes af en zet ze opzij tot gebruik.
OPMERKING: De standaard van maïsstengel levert energie om rumenmicroben tijdens de incubatie in stand te houden, omdat de biomassa van de dwarsdoorsneden van de stengel onvoldoende is om de microbiële activiteit te handhaven. - Vul een circulerend waterbad met voldoende water en laat het equilibreren naar 39 °C voordat de incubatie begint. Stel de waterdiepte zo in dat de 35 mL markering op de 50 mL buisjes bedekt is, en gebruik indien nodig een beluchter om een uniforme watercirculatie en temperatuur te handhaven.
- Bereiding van McDougall-buffer voor de inoculatie-oplossing
- Bereid de McDougall-buffer niet meer dan 2 dagen voordat de incubaties beginnen.
OPMERKING: Meng de McDougall-buffer met rumenvocht in een verhouding van 4:1 om de inoculatie-oplossing te bereiden. Pas het buffervolume aan aan het aantal monsters en bereid voldoende inoculatie-oplossing voor om 30 mL per buisje te kunnen leveren. - Meet 1.600 mL ultrapuur water af. Breng 1 L over in een platte Erlenmeyer van 3 L en reserveer 600 mL voor het overbrengen en spoelen van reagentia.
- Plaats een magnetische roerstaaf in de Erlenmeyer en zet de fles op een roerplaat.
- Plaats een plastic trechter in de Erlenmeyer. Voeg 15,7 g natriumbicarbonaat (NaHCO₃), 5,9 g watervrij dinatriumfosfaat (Na₂HPO₄), 0,91 g kaliumchloride (KCl), 0,75 g natriumchloride (NaCl), 0,19 g magnesiumsulfaatheptahydraat (MgSO₄·7H₂O) en 0,06 g calciumchloride-dihydraat (CaCl₂) toe, waarbij u één reagens tegelijk toevoegt en elk reagens laat oplossen voordat het volgende wordt toegevoegd. Gebruik delen van de gereserveerde 600 mL ultrapuur water om de trechter na elke toevoeging te spoelen.
- Plaats na het toevoegen van calciumchloride-dihydraat een CO₂-diffuser om de oplosbaarheid te vergemakkelijken en spuit de oplossing door. Zodra de oplossing helder wordt, gaat u nog 10–15 min verder met spuiten.
- Sluit de fles stevig af met een stop en zet de stop vast met maskeringsband, omdat het opwarmen van de buffer de container onder druk kan zetten.
- Bewaar de oplossing bij 20 °C gedurende maximaal 2 dagen. Plaats de oplossing de dag voor gebruik in een waterbad van 39 °C, of plaats deze direct in het waterbad van 39 °C als deze de volgende dag zal worden gebruikt.
- Bereid de McDougall-buffer niet meer dan 2 dagen voordat de incubaties beginnen.
4. In vitro incubatie van stengeldoorsneden
- Plaats op de dag van de incubatie 47 mL water en 4 mL 1 N NaOH in een bekerglas van 100 mL in een zuurkast, en voeg 0,625 g cysteïne-HCl toe. Voeg in een tweede bekerglas van 100 mL 0,625 g natriumsulfide toe aan 47 mL water, en houd de twee oplossingen gescheiden totdat de inoculatie-oplossing is bereid.
- Vul een geïsoleerde thermoskan met warm water om een warme omgeving te creëren voor het transporteren van rumenmicro-organismen van de koe naar het laboratorium. Neem een emmer van vijf gallon mee om het warme water uit de thermoskan over te hevelen.
- Ga naar de stal om rumenvocht te verzamelen bij de gecannuleerde koe die door het stalbeheer aan het experiment is toegewezen.
OPMERKING: Verzamel rumenvocht ongeveer op hetzelfde tijdstip van de dag en van dezelfde koe gedurende het gehele experiment om variatie te minimaliseren. Stem met het stalbeheer af om vooraf aan te geven wanneer u in de stal zult zijn om rumenvocht te verzamelen. - Identificeer de experimentele koe en draag passende persoonlijke beschermingsmiddelen, inclusief een laboratoriumjas, oogbescherming, overtreklaarzen en schouderlange handschoenen.
OPMERKING: Beperk de procedures in stappen 4.4–4.8 tot personeel dat is geautoriseerd onder het toepasselijke IACUC-protocol. - Giet het warme water uit de thermoskan in de emmer van vijf gallon. Bereid twee lagen gaas van graad 50 (kaasdoek) voor om het rumenmateriaal te filteren.
- Verzamelen van rumenvocht bij de gecannuleerde koe
- Open voorzichtig de canula en plaats de stop in de emmer van vijf gallon met warm water om contaminatie van de stop te voorkomen. Verwijder met een gehandschoende hand voldoende materiaal uit de rumen om de vast-vloeistofinterface van de rumen te bereiken.
- Zodra de vast-vloeistofinterface is bereikt, verzamel dan enkele handvols materiaal en knijp dit door twee lagen gaas van graad 50, elk ongeveer 45 cm vierkant, in een voorverwarmde thermoskan met schroefdop. Gooi het gebruikte materiaal weg nadat het rumenvocht door het gaas is geknepen.
- Herhaal stap 4.6.2 totdat er 1 L rumenvocht in de thermoskan zit voor elke set van 60 inoculatiebuisjes, waarbij het volume naar behoefte wordt aangepast op basis van het aantal te incuberen monsters.
OPMERKING: Gecannuleerde koeien hebben specifieke limieten voor de hoeveelheid rumenvocht die per week kan worden onttrokken. Communiceer met de stalmanager om ervoor te zorgen dat de onttrokken hoeveelheid rumenvocht de limiet voor de koe niet overschrijdt.
- Sluit na het verzamelen van voldoende rumenvocht de thermoskan stevig om de temperatuur te behouden. Plaats de canula terug en gebruik het warme water in de emmer van vijf gallon voor de reiniging.
- Gooi vervuilde overtreklaarzen, handschoenen en gaas bij het verlaten van de stal in de juiste afvalbak. Keer zo snel mogelijk terug naar het laboratorium om de temperatuur en de anoxische condities van het rumenvocht te behouden.
- Combineer bij terugkomst in het laboratorium de twee oplossingen van het reductiemiddel (zie 4.1) in de zuurkast en meng deze om de reductie-oplossing te bereiden.
- Plaats een glazen bekerglas met een capaciteit van ten minste 2 L, voorzien van een grote roerstaaf, op een verwarmde roerplaat die is ingesteld op <30 °C, en positioneer een CO₂-diffusor boven de vloeistof. Voeg 1.600 mL McDougall-buffer toe en roer langzaam zonder dat de CO₂-diffusor de vloeistof raakt.
OPMERKING: Indien gewenst kan bij deze lage temperatuur een polypropyleen bekerglas worden gebruikt. Gebruik CO₂ om O₂ te verdringen en anoxische condities te helpen behouden. - Bekleed een grote trechter met twee lagen kaasdoek van graad 50 en plaats deze over een maatkolf van 2 L. Filtreer 400 mL rumenvocht en voeg dit toe aan de McDougall-buffer (zie 3.4.7) om de inoculatie-oplossing te bereiden.
- Voeg 80 mL van de reductie-oplossing (zie 4.9) toe aan de inoculatie-oplossing en meng langzaam. Voorkom dat de CO₂-diffusor in contact komt met de vloeistof.
- Verwijder in de zuurkast de doppen van de incubatiebuisjes en organiseer deze in aparte rekken per incubatietijd. Open de dopjes van de pre-incubatie bewaarbuisjes ter voorbereiding op het overbrengen van de slides (zie 1.1.2).
- Selecteer willekeurig telkens één pre-incubatie bewaarbuisje en gebruik een pincet om de gemonteerde glazen slides over te brengen naar het overeenkomstige incubatiebuisje (zie 1.1.3). Plaats elk incubatiebuisje met de gemonteerde slides in een klein monsterrek en leg het pre-incubatie bewaarbuisje opzij.
OPMERKING: Laat twee personen stappen 4.14–4.15 uitvoeren. Minimaliseer waar mogelijk de afkoeling van het rumenvocht-buffermengsel. - Trek 30 mL inoculatie-oplossing op in een spuit van 60 mL voorzien van een stompe, groot lumen naald. Doseer de oplossing langzaam langs de wand van het incubatiebuisje, spoel het buisje ongeveer 20 s door met CO₂, sluit het buisje met de dop en plaats het terug in het rek.
- Plaats de rekken met de geïnoculeerde buisjes in een waterbad van 39 °C. Wriem de buisjes minstens één keer per dag zachtjes en wissel de posities van de rekken dagelijks af om ongelijkmatige verhitting te minimaliseren.
OPMERKING: De vorming van gasbellen in de buisjes wijst op actieve fermentatie. - Verwijder aan het einde van elke incubatieperiode het overeenkomstige rek uit het waterbad. Open de buisjes één voor één, verwijder elke slide en spoel vaste stoffen en resterende inoculatie-oplossing voorzichtig weg met ultrapuur water.
- Plaats de gespoelde slides in de post-incubatie bewaarbuisjes die het glycerol-watermengsel bevatten zoals beschreven in stap 1.1.4.
5. Dwarsdoorsnedekleuring voor lignine
- Indien de objectglazen zijn bewaard in een 50:50 glycerol-watermengsel, overdraag dan beide objectglazen met de gemonteerde dwarsdoorsneden naar pre-staining spoelbuisjes met de ethanol-ultrapuur water-oplossing (zie 1.1.5). Bewaar de buisjes een nacht in een koelkast om glycerol te verwijderen vóór het kleuren.
- Bereid een 3% phloroglucinol (PG)-oplossing door 0,3 g PG op te lossen in 10 mL absolute ethanol in een 25 mL Erlenmeyercolf, gewikkeld in aluminiumfolie om het lichtgevoelige reagens tegen licht te beschermen. Sluit de colf af en label deze met de naam van de oplossing, de bereidingsdatum en de naam van de bereider, en bewaar deze bij 20 °C.
- Haal de objectglazen uit de gekoelde buisjes en breng ze tijdelijk over naar de hydrateringsbuisjes beschreven in stap 1.1.6, die 100% ultrapuur water bevatten.
OPMERKING: Houd de dwarsdoorsneden tijdens de behandeling gehydrateerd om oxidatie te minimaliseren, aangezien dit de coupes kan beschadigen en de daaropvolgende beeldvorming kan beïnvloeden. - Bereid de Wiesner-kleuring in de zuurkast met een pipetteur door 50 μL 3% PG in ethanol (zie 5.2) te mengen met 25 μL zoutzuur (HCl) in een bekerglas van 50 mL.
OPMERKING: Pas de hoeveelheden aan het aantal objectglazen aan, waarbij een PG-tot-HCl-verhouding van 2:1 wordt gehandhaafd.
WAARSCHUWING: Hanteer zoutzuur in een zuurkast omdat het corrosief is voor metalen, ernstige huidverbrandingen en oogschade veroorzaakt en irritatie aan de luchtwegen kan veroorzaken. Vermijd het inademen van dampen of aerosols, draag geschikte beschermende handschoenen, kleding, oogbescherming en gezichtsbescherming, en was de blootgestelde huid grondig na gebruik. - Haal één objectglas uit het buisje en dep het glas rond de dubbelzijdige tape voorzichtig droog met een pluisvrij tissue om te voorkomen dat de kleurstof van de tape afstroomt. Plaats het objectglas op een klein plastic plateau en gebruik een pipet om enkele druppels Wiesner-kleurstof over de dwarsdoorsneden aan te brengen.
- Stel een timer in op 12 min en dek de objectglazen af met aluminiumfolie om ze tegen licht te beschermen. Controleer de dwarsdoorsneden tijdens het kleuren en breng indien nodig opnieuw kleurstof aan om uitdroging te voorkomen.
OPMERKING: Voorkom dat de dwarsdoorsneden uitdrogen, omdat oxidatie het weefsel kan beschadigen en de daaropvolgende beeldvorming kan beïnvloeden. - Verwijder na 12 min voorzichtig het overtollige Wiesner-kleurmiddel met een pluisvrij tissue. Was het weefsel vóór het monteren om blootstelling van de objectieflens van de microscoop aan corrosieve HCl-dampen te minimaliseren.
- Breng 1–2 druppels 50% glycerol-ultrapuur water aan over elke dwarsdoorsnede en dek deze af met een 24 mm × 30 mm dekglas (dikte No. 1.5). Ga onmiddellijk over tot microscopische analyse en beeldvorming.
OPMERKING: Neem de beelden op binnen 6–8 h, omdat de Wiesner-kleuring tijdsgevoelig is en na verloop van tijd geel kan worden en vanuit de dwarsdoorsnede kan diffunderen.
6. Dwarsdoorsnedekleuring voor pectine
- Volg stap 5.1 om het glycerol-ultrapuur watermengsel van de bewaarde coupes te verwijderen vóór het kleuren.
- Bereid een 0,02% rutheniumrood-oplossing voor door 0,02 g rutheniumrood op te lossen in 100 mL ultrapuur water in een 125 mL Erlenmeyerkolf, omwikkeld met aluminiumfolie om het lichtgevoelige reagens tegen licht te beschermen. Sluit de kolf af en label deze met de naam van de oplossing, de datum van bereiding en de naam van de bereider, en bewaar deze bij 20 °C.
- Haal de coupes uit de gekoelde ethanol-ultrapuur watertubes en breng de correct gelabelde coupes met gemonteerde secties over naar tubes met 100% ultrapuur water (zie 1.1.6) voor tijdelijke bewaring.
OPMERKING: Volg de voorzorgsmaatregelen voor hydratatie zoals beschreven in stap 5.3. - Verwijder één coupe uit het ultrapure water met een pincet en dep het water rond de tape weg met een pluisvrij doekje om te voorkomen dat de kleurstof op het glas loopt. Plaats de coupe op een klein plastic dienblad.
- Breng enkele druppels rutheniumrood-oplossing (zie 6.2) aan om de dwarsdoorsneden gelijkmatig te bedekken. Bedek de coupes gedurende 10 min met aluminiumfolie om ze tegen licht te beschermen, en spoel vervolgens de kleurstof voorzichtig van de coupe af met ultrapuur water gedurende 2 min.
- Dep overtollig water van de coupe en breng 1–2 druppels 50% glycerol-ultrapuur water aan over elke dwarsdoorsnede. Bedek de dwarsdoorsneden met een dekglas van 24 mm × 30 mm (dikte nr. 1,5) en ga over tot microscopische analyse en beeldvorming.
OPMERKING: Voer de microscopische analyse op dezelfde dag uit voor optimale resultaten.
7. Brightfield-beeldvorming
- Observeer de dwarsdoorsneden onder brightfield-verlichting met een microscoop bij vergrotingen van 10×, 20× en 40×. Zie Tabel 1 voor de parameters en instellingen voor beeldacquisitie.
Resultaten
Het gebruik van centrifugebuizen om pensomstandigheden na te bootsen maakte een relatief snelle en goedkope in vitro vertering van dwarsdoorsneden van Medicago sativa-stengels mogelijk. Met een glijmicrotoom werden dwarsdoorsneden van 10 μm dik van M. sativa-stengels geprepareerd (Afbeelding 1A). De dwarsdoorsneden van de stengel werden met dubbelzijdige tape op glasplaatjes bevestigd (Afbeelding 1B) en ondergedompeld in een inoculatieoplossing van pensvloeistof voor incubatieperioden variërend van 4 u tot 96 u (Afbeelding 1C). Voor de in vitro incubatie werden afgesloten wegwerpcentrifugebuizen van 50 mL gebruikt als incubatievaten, aangevuld met 0,2 g tot 1 mm gemalen maïsstengel-substraat om de pensmicro-organismen tijdens de incubatie in stand te houden. De buizen werden geïncubeerd in een waterbad dat op 39 °C werd gehouden (Afbeelding 1D). Actieve fermentatie door pensmicro-organismen werd visueel bevestigd door de vorming van gasbellen in de inoculatieoplossing. De materialen die nodig zijn voor dit protocol zijn algemeen beschikbaar in natchemische laboratoria. De dubbelzijdige tape voorkwam de weefselafbraak tijdens blootstelling aan pensvloeistof niet, maar hield de delen van de stengel vast die na de vertering overbleven, waardoor daaropvolgende kleuring en microscopische visualisatie mogelijk waren.
Dwarsdoorsneden van stengels die niet waren blootgesteld aan in vitro incubatie (0 h) maakten visualisatie mogelijk van de initiële celwandcomponenten in verschillende stengelweefsels. Dwarsdoorsneden gekleurd met Wiesner-kleuring identificeerden weefsels met lignine-geassocieerde kleuring (Figuur 2A–E), terwijl dwarsdoorsneden gekleurd met rutheniumrood de weefsels met pectine-geassocieerde kleuring accentueerden (Figuur 3A–E). In de met Wiesner gekleurde coupes vertoonden volwassen primaire floeembvezels een fuchsia-kleuring (Figuur 2B–E). Xyleemvaten en interfasciculair xyleem vertoonden eveneens een fuchsia-kleuring (Figuur 2B–D). Rutheniumroodkleuring werd waargenomen in de epidermis, het collenchym, het chlorenchym, het secundaire floëem (Figuur 3B–E) en het merg (Figuur 3B–D). Sommige interfasciculair xyleem en primaire floëemvezels kleurden ook met rutheniumrood (Figuur 3B–E). Dwarsdoorsneden van de gehele stengel werden gevisualiseerd door het samenvoegen van een 5 × 5 raster van afbeeldingen verkregen bij 10× vergroting (Figuur 2A en Figuur 3A). Aanvullende afbeeldingen van één regio van de stengeldwarsdoorsnede werden verkregen bij 10× (Figuur 2B en Figuur 3B), 20× (Figuur 2C en Figuur 3C) en 40× vergroting boven (Figuur 2D en Figuur 3D) en onder (Figuur 2E en Figuur 3E) het vasculair cambium.
Wiesner-gekleurde weefsels van dwarsdoorsneden van de stengel van M. sativa waren zichtbaar bij alle in vitro incubaties van 0 h tot 96 h (Figuur 4A–F). Bij 0 h hebben alle cellen duidelijke randen (Figuur 4A). Na 8 h was weefseldegradatie zichtbaar door het vervagen van de randen van cellen met dunne, niet-gelignificeerde (d.w.z. ongekleurde) celwanden (bijv. collenchym) en het verdwijnen van cellen (bijv. secundair floëem). Na 24 h werd de spiraalvormige driedimensionale structuur van de xyleemvaten duidelijker naarmate de omringende weefsels degradeerden (Figuur 4D). Na 24 h degradeerden en verdwenen de ongekleurde cellen progressief (Figuur 4D–F). Naarmate deze weefsels degradeerden, zorgde het verlies van anatomische ondersteuning ervoor dat de ongekleurde epidermis zijdelings inklapte, waardoor het uiterlijk van een lint van dunne, transparante cellen ontstond bij 24, 48 en 96 h (Figuur 4D–F).
In vitro incubatie van dwarsdoorsneden van M. sativa-stengels, gevolgd door rutheniumroodkleuring, maakte visualisatie mogelijk van pectine-geassocieerde kleuring in stengelweefsels na 0–96 h blootstelling aan rumenvocht (Figuur 5A–F). Bij 0 tot 4 h duiden duidelijke randen rond alle cellen erop dat deze intact waren (Figuur 5A,B). Naarmate de incubatietijd vorderde naar 8 h, verloren weefsels met dunne, niet-verhoute celwanden in de cortex, waaronder het collenchym, chlorenchym en secundair floëem, geleidelijk hun structurele integriteit, wat resulteerde in het vervagen van de celranden (Figuur 5C). Bij 24, 48 en 96 h was een groot deel van het omringende corticale weefsel afwezig, terwijl delen van de epidermis, interfasciculair xyleem, merg en vasculaire weefsels zichtbaar bleven (Figuur 5D–F). Het verlies van de omringende anatomische structuur ging gepaard met een laterale collaps van de epidermale regio. Tegen 96 h was er aanzienlijk minder met rutheniumrood gekleurd weefsel overgebleven dan bij de eerdere incubatietijden (Figuur 5F). Over het algemeen ging het progressieve verlies van stengelweefsel tijdens de incubatie gepaard met een afname van cellen die positief kleurden voor rutheniumrood. De degradatie en het verdwijnen van dunne, niet-verhoute en pectine-geassocieerde cellen waren te verwachten, aangezien pectine in de loop van de tijd gemakkelijk degradeert.
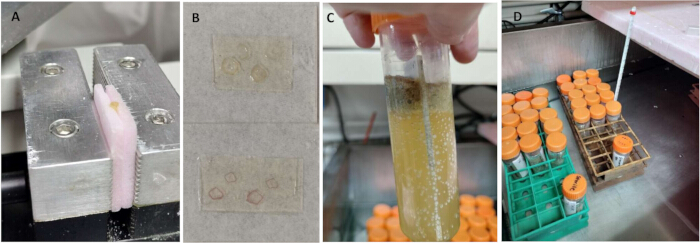
Figuur 1: In vitro incubatie van dwarsdoorsneden van alfalfestengels. (AStengelsegmenten van alfalfa werden klemgezet tussen twee stukken geëxtrudeerd polystyreen hard schuimisolatie en gemonteerd op de verschuifbare tafel van een microtoom voor het maken van dwarsdoorsneden.B) Vier dwarsdoorsneden, elk 100 μm dik, werden met dubbelzijdige tape op een glazen objectglas bevestigd voor in vitro incubatie en histologische kleuring. (CTwee objectglazen werden rug-aan-rug geplaatst, met de dubbelzijdige tape naar buiten gericht, in een buis van 50 mL met 30 mL inoculatieoplossing van rumenvocht-buffer en 0,2 g maïsstengel, gemalen tot 1 mm. De buis werd gespoeld met CO₂ en afgesloten voor incubatie. Gasbellen langs de wand van de buis wezen op actieve fermentatie door rumenmicroorganismen tijdens de incubatie.D) Rekken met de 50 mL buizen werden bewaard in een 39 °C waterbad gedurende de gehele incubatie. Het waterniveau bedekte de inoculatieoplossing, maar bleef onder de openingen van de buisjes om te voorkomen dat er water in de buisjes zou lopen. Klik hier om een grotere versie van deze figuur te bekijken.
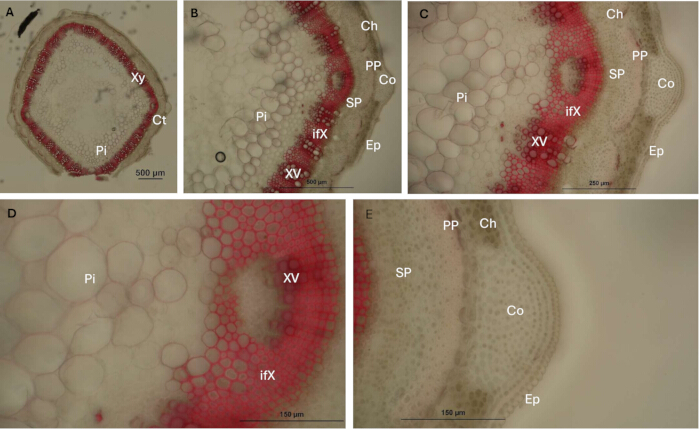
Figuur 2Wiesner-kleuring van alfalfestamweefsels geeft de distributie van verlignende celwandcomponenten aan. (A–E) Niet verteerde dwarsdoorsneden van alfalfestengels (incubatietijd = 0 u) dienden als initiële referentie voor het identificeren van stengelsweefsels die Wiesner-kleuring vertoonden. Xyleemvaten (XV), interfasciculair xyleem (ifX) en rijpe primaire floeembundelvezels (PP) kleurden fuchsia. Vergrotingen en schaalbalken: (A) 5 × 5 raster van samengevoegde beelden verkregen bij 10× vergroting, schaalbalk = 500 μm; (B) 10×, schaalbalk = 500 μm; (C) 20×, schaalbalk = 250 μm; (D, E) 40×, schaalbalken = 150 μmAfkortingen: Xy = xyleem; Ct = cortex; Pi = merg; Ep = epidermis; Co = collenchym; Ch = chlorenchym; SP = secundair floëem; XV = xyleemvaten; ifX = interfasciculair xyleem; PP = rijpe primaire floëemvezels. Klik hier om een grotere versie van deze figuur te bekijken.
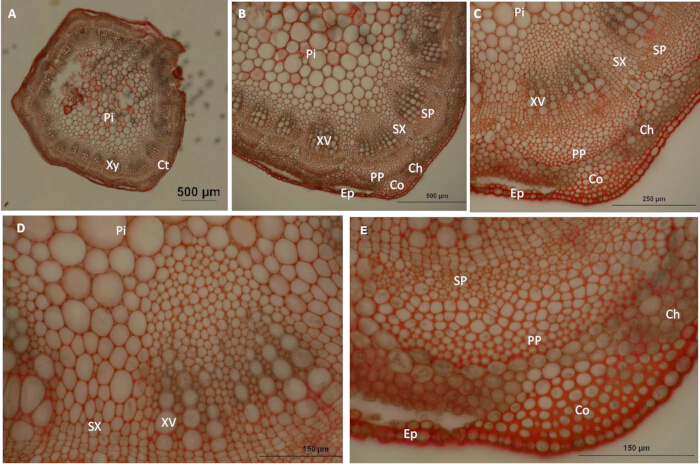
Figuur 3Rutheniumroodkleuring van alfalfa-stengelweefsels geeft de distributie van pectinepolysachariden in celwanden aan. (A–E) Onverteerde dwarsdoorsneden van alfalfestengels (incubatietijd = 0 u) dienden als initiële referentie voor het identificeren van stengelweefsels die rutheniumrood-kleuring vertoonden. Epidermis (Ep), collenchym (Co), chlorenchym (Ch), secundair floëem (SP) en merg (Pi) vertoonden rode kleuring. Secundair xyleem (SX) en volwassen primair floëem (PP) vertoonden eveneens kleuring, terwijl xyleemvaten (XV) relatief ongekleurd bleven. Vergrotingen en schaalbalken: (A) 5 × 5 raster van samengevoegde beelden verkregen bij 10× vergroting, schaalbalk = 500 μm; (B) 10×, schaalbalk = 500 μm; (C) 20×, schaalbalk = 250 μm; (D, E) 40×, schaalbalken = 150 μmAfkortingen: Xy = xyleem; Ct = cortex; Pi = merg; Ep = epidermis; Co = collenchym; Ch = chlorenchym; SP = secundair floëem; XV = xyleemvaten; SX = secundair xyleem; PP = volwassen primair floëem. Klik hier om een grotere versie van deze figuur te bekijken.
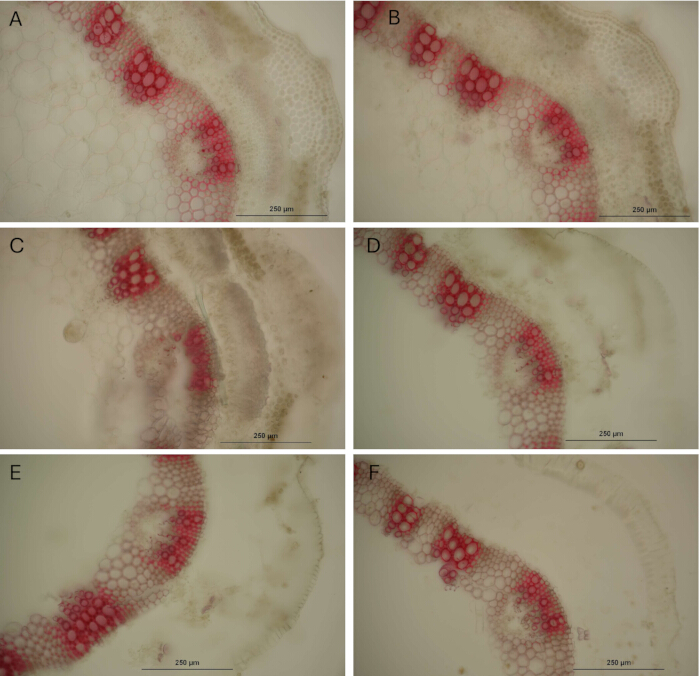
Figuur 4Veranderingen in alfalfestengeweefsels na in vitro incubatie en Wiesner-kleuring. Dwarsdoorsneden van alfalfestengels uit dezelfde internodia werden onderworpen aan in vitro incubatie met rumenvocht gedurende (A) 0 u, (B) 4 u, (C) 8 u, (D) 24 u, (E) 48 u, en (F) 96 u. Xyleemvaten (XV), interfasciculair xyleem (ifX) en volwassen primaire floeembundelvaten (PP) behielden de Wiesner-kleuring gedurende de incubatieperioden. In onrijp stengeweefsel werd een zwakke kleuring van het ifX waargenomen. Naarmate de incubatietijd toenam, verloren de omringende weefsels progressief hun structurele integriteit, waardoor de overgebleven gekleurde vasculaire structuren steeds duidelijker zichtbaar werden. Schaalbalken = 250 μm. Klik hier om een grotere versie van deze figuur te bekijken.
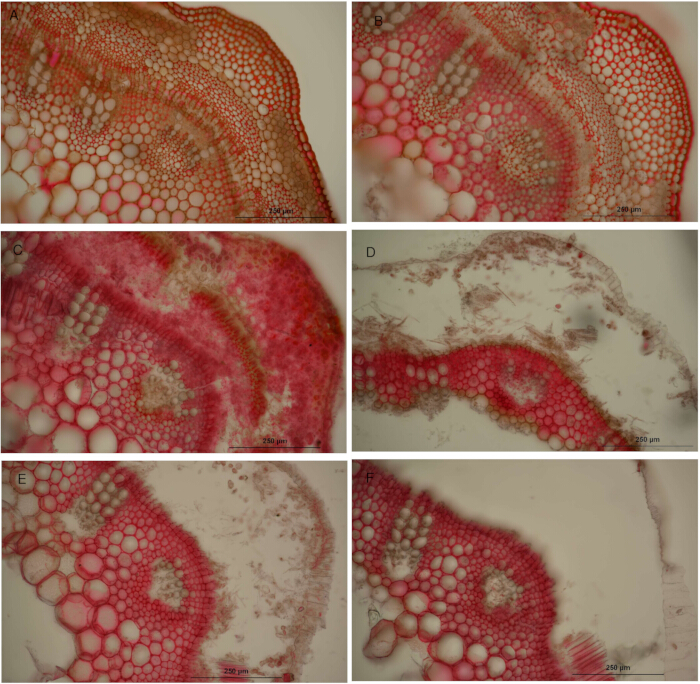
Figuur 5Veranderingen in alfalfestamweefsels na in vitro incubatie en kleuring met rutheniumrood. Dwarsdoorsneden van alfalfestengels uit dezelfde internodia werden onderworpen aan in vitro incubatie met pensvloeistof gedurende (A) 0 u, (B) 4 u, (C) 8 u, (D) 24 u, (E) 48 u, en (F) 96 u. Rutheniumroodkleuring werd waargenomen in meerdere stamweefsels, terwijl xyleemvaten (XV) relatief ongekleurd bleven. Naarmate de incubatietijd toenam, werd een progressief verlies van weefselstructuur en rutheniumroodkleuring waargenomen. Delen van de xyleemvaten, interfasciculair xyleem (ifX) en de epidermale regio (Ep) bleven zichtbaar bij latere incubatietijden. Schaalbalken = 250 μm. Klik hier om een grotere versie van deze figuur te bekijken.
| Parameter | Instelling |
| Snel (Focus) | 2000 × 1328 |
| Kwaliteit (opname) | 2000 × 1328 |
| Kleurmodus | RGB-kleur |
| Bitdiepte | 8-bit per kanaal |
| Effectieve kleurdiepte | 24-bits RGB (8-bits R + 8-bits G + 8-bits B) |
| Versterking | 2 |
| belichtingstijd bij 10x vergroting (ms) | 30 |
| belichtingstijd bij 20x vergroting (ms) | 50 |
| 150x vergroting belichtingstijd (ms) | 150 |
Tabel 1: Microscoop- en camera-instellingen voor beeldvorming. Microscoop-, camera- en beeldacquisitie-instellingen gebruikt voor brightfield-beeldvorming met een rechtopstaande microscoop uitgerust met een digitale kleurencamera en beeldvormingssoftware.
Discussie
Het alfalfamateriaal dat in de huidige studie is gebruikt, bestond uit klonen van vijf alfalfalijnen. Twee experimentele lijnen werden geselecteerd na twee cycli van divergente selectie op in vitro verteerbaarheid van neutraal detergentvezel (IVNDFD) uit moederplanten met respectievelijk een lage 16 u IVNDFD en lage 96 u IVNDFD, of een hoge 16 u IVNDFD en hoge 96 u IVNDFD12. Drie commerciële lijnen met onbekende genetische achtergronden werden ook in de studie opgenomen, waarbij moederplanten werden geselecteerd op basis van nabij-infraroodspectroscopie-analyse om individuen te identificeren met (a) de hoogste ligninegehalte, (b) het laagste ligninegehalte en (c) de laagste neutraal detergentvezel en zuur detergentvezel. De vijf alfalfalijnen werden in mei 2021 vanuit een kas verplant naar gerepliceerde veldproeven op twee locaties in Minnesota, VS. Voor zowel de eerste als de tweede oogst van elk groeiseizoen werden 10 stengels van elke alfalfalijn geoogst in de vegetatieve fase, vroege knopvorming, vroege bloei, bloei en de fase van groene peulen van de plantrijping. Het zevende internodium vanaf de basis van elke stengel werd uitgesneden en geplaatst in een 50 mL buis met een 50:50 mengsel van 200-proof ethanol en ultrapuur water voor bewaring tot de incubatie van de dwarsdoorsneden. Deze methode is ontwikkeld op basis van werk dat eerder in de jaren 90 door de laboratoriumgroep is uitgevoerd, waarbij het zevende internodium werd gekozen als studie-eenheid4,6.
In vitro incubatie met pensvloeistof en histologische kleuring van alfalfestengels werden gebruikt om inzicht te krijgen in de depositiepatronen van celwandcomponenten in afgebroken stengeweefsels. De in vitro incubaties simuleerden de mate van degradatie die een alfalfestengel in de pens ondergaat, en de daaropvolgende histologische kleuring maakte lignine en pectine zichtbaar in cellen waarin deze celwandcomponenten na een tijdgebonden microbiële digestie nog detecteerbaar waren. Het gebruik van een glijmicrotoom zorgde voor een gestandaardiseerde doorsnededikte om sectie-artefacten te minimaliseren die de resultaten zouden kunnen beïnvloeden13. Hoewel in het huidige protocol slechts lignine en pectine werden onderzocht, kunnen alternatieve kleurstoffen zoals toluidineblauw, Astra-blauw en Direct Red 23 ook worden gebruikt voor de histologische kleuring van deze en andere celwandcomponenten14,15,16. Daarnaast kan gepolariseerd licht worden gebruikt om cellulose in celwanden te detecteren, en fluorescerende reagentia zoals safranine O kunnen lignine17 en celwandpolysacchariden visualiseren. Bovendien kunnen antilichamen worden gebruikt om specifieke pectinen te labelen18. Naast alfalfa kan dit protocol worden toegepast op andere soorten. De kleuringsreacties kunnen echter variëren tussen soorten, genotypen, ontwikkelingsstadia en omgevingsfactoren19.
Het gebruik van goedkope dubbelzijdige plakband om dwarsdoorsneden van stengels op objectglazen te bevestigen is eerder beschreven6,20. Voordat dit in vitro incubatieprotocol werd gestart, was het noodzakelijk om een dubbelzijdig plakband te identificeren dat bestand was tegen onderdompeling in vloeistof gedurende meerdere dagen en gemakkelijk verkrijgbaar was. Verschillende soorten plakband, variërend in beoogd industrieel gebruik en dikte, werden geëvalueerd. Kort samengevat werden stukjes dubbelzijdig plakband van 1 inch lang en dwarsdoorsneden van stengels op objectglazen bevestigd en gedurende verschillende perioden gedurende een week in water ondergedompeld om te bepalen of ze aan de glazen gehecht bleven. Sommige soorten dubbelzijdig plakband lieten los van de objectglazen, terwijl andere ondoorzichtig werden na langdurige blootstelling aan vloeistof. Het verlies van transparantie van het plakband hinderde de microscopie en verhinderde het verkrijgen van beelden van hoge kwaliteit van de dwarsdoorsneden van de stengels. Een vinyl dubbelzijdig plakband presteerde het best van de geteste lijmen. Het plakband dat in de oorspronkelijke experimenten werd gebruikt, was in de jaren 90 gekocht en bleef effectief; echter kon hetzelfde product niet worden verkregen voor latere experimenten. Daarom moet het geselecteerde plakband vóór gebruik worden getest om er zeker van te zijn dat zowel het plakband als de dwarsdoorsneden gedurende de gehele incubatieperiode gehecht blijven. Het plakband moet tevens transparant blijven om het verkrijgen van beelden van hoge kwaliteit mogelijk te maken.
Het in vitro incubatiegedeelte van het protocol omvatte meerdere tijdgevoelige stappen die zorgvuldige planning en coördinatie vereisten. De totale tijd die nodig is voor de in vitro incubatieprocedure kan variëren afhankelijk van de omvang van het experiment. Om bijvoorbeeld een robuuste dataset van stambestek-dwarsdoorsneden te genereren, werden vier unieke alfalfastengels op elke slide gemonteerd voor elke combinatie van monster × in vitro incubatieinterval × kleuring. Met 16 monsters, zes incubatieintervallen en twee kleuringsmethoden waren in totaal 768 dwarsdoorsneden nodig voor elke in vitro incubatieronde. Er was ongeveer 8 h nodig om de 768 dwarsdoorsneden voor te bereiden, die vervolgens gedurende de nacht konden worden bewaard in petrischalen met ultrapuur water en de volgende dag konden worden gemonteerd. Voorafgaand aan de montage moesten 192 glazen slides en 96 centrifugebuizen (50 mL) worden gelabeld. Het monteren van de dwarsdoorsneden vereiste nog eens 8 h, omdat de secties consistent werden georiënteerd over de incubatieintervallen en kleuringen heen om vergelijkingen tussen stambeweefsels te vergemakkelijken. Deze aanpak vereiste meer tijd dan het willekeurig monteren van de dwarsdoorsneden. De gemonteerde slides werden gedurende de nacht bewaard in ultrapuur water voordat de in vitro incubatie de volgende dag werd gestart. Terwijl de dwarsdoorsneden van de alfalfastengels werden voorbereid en gemonteerd, moest ook de McDougall-buffer worden bereid. De buffer kon uiterlijk 2 dagen voor het starten van de in vitro incubatie worden bereid en moest worden opgewarmd tot 39 °C vóór de inoculatie van de gemonteerde dwarsdoorsneden. Daarom waren zorgvuldige planning en voorbereiding noodzakelijk voor de succesvolle voltooiing van het protocol.
De Wiesner-kleuring wordt veelvuldig gebruikt om lignine-geassocieerde structuren in plantenweefsels te visualiseren. Hoewel deze kleuringsmethode relatief eenvoudig is21 en redelijk specifiek22, kleurt het cinnamaldehyde-eindgroepen die geassocieerd zijn met guaiacyl (G)-lignine-eenheden13. In dicotyle angiospermen zoals alfalfa zijn G- en syringyl (S)-eenheden de primaire bestanddelen van het ligninepolymeer, hoewel er ook H-ring-subeenheden aanwezig zijn. Wiesner-kleuring kan daarom de totale hoeveelheid lignine in de stengel onderschatten omdat het niet reageert met S-lignine. Zowel G- als S-eenheden kunnen aanwezig zijn in interfasciculair xyleem en primaire floeembundels (d.w.z. sclerenchymweefsels); daarom kan, hoewel S-eenheden mogelijk niet reageren met de Wiesner-kleuring, de kleuring van G-eenheden de aanwezigheid van lignine-geassocieerde structuren in deze weefsels aangeven. Mäule-kleuring zou kunnen worden gebruikt om S-eenheden te visualiseren en een completere weergave van de lignine-eenheden in de stengel te geven13. Variaties in de intensiteit van rutheniumrood-kleuring van pectine kunnen ook optreden, afhankelijk van de esterificatie- of de-esterificatietoestand van pectinezuur23. De kleuring kan variëren van een geeloranje tint tot een helderrode kleur. Omdat rutheniumrood met verschillende koolhydraten kan interageren, kan het gebruik van deze kleurstof leiden tot een overschatting van pectine in weefsels11. Omdat het aandeel lignine toeneemt naarmate de alfalfestengel rijpt, kan lignine in oudere stengels ook de pectinekleuring beïnvloeden. Verschillen tussen tinten van een bepaalde kleurstof kunnen visueel moeilijk te onderscheiden zijn; beeldanalysetechnologieën kunnen echter helpen deze beperking te overwinnen.
Na in vitro incubatie met pensvloeistof en histologische kleuring kunnen dwarsdoorsneden van de stengels onder een microscoop worden gevisualiseerd en kunnen afbeeldingen worden vastgelegd voor daaropvolgende analyse. Omdat de Wiesner-kleuring binnen 24 u9 vervaagt, moet de brightfield-microscopische analyse van op lignine gekleurde stengels op dezelfde dag als de kleuring worden voltooid, idealiter binnen 6–8 u, om een consistente kleur over de afbeeldingen te waarborgen. De kleuring met rutheniumrood behoudt zijn intensiteit in de loop van de tijd; daarom is beeldvorming op dezelfde dag minder kritisch. Desondanks werden ook afbeeldingen gekleurd met rutheniumrood binnen 6–8 u vastgelegd voor de consistentie. Afbeeldingen werden vastgelegd met een digitale kleurenmicroscoopcamera met hoge definitie en hoge resolutie, uitgerust met een CMOS-beeldsensor met groot formaat. Dezelfde belichting, analoge gain, bitdiepte, beeldkwaliteit en focusinstellingen werden gebruikt om de vergelijkbaarheid tussen afbeeldingen te waarborgen en variatie door verschillen in acquisitie-instellingen te minimaliseren. De belichtingstijd werd aangepast aan de vergroting (10×, 20× en 40×) om over- of onderbelichting te voorkomen en beelden van hoge kwaliteit te produceren. Vergelijkingen moeten daarom worden gemaakt tussen afbeeldingen die bij dezelfde vergroting zijn vastgelegd om variatie door verschillende belichtingsinstellingen te minimaliseren. De instellingen voor beeldvorming kunnen worden aangepast afhankelijk van de gebruikte microscoop en camera (Tabel 1). Andere microscopietechnieken, waaronder scanning elektronenmicroscopie 6,20 en fluorescentiemicroscopie14,15,17, zijn ook gebruikt om celwandcomponenten te visualiseren, hoewel in het huidige protocol brightfield-microscopie is gebruikt.
Dit protocol genereerde een grote dataset van dwarsdoorsneden van stengels (>15.000), die kan worden benut om de kwalitatieve informatie die in dit protocol via histologische kleuring is gegenereerd, uit te breiden naar kwantitatieve analyse met behulp van machine learning-technologieën. Efficiënte pipelines voor beeldanalyse kunnen de extractie van kwantitatieve gegevens uit beelden automatiseren en versnellen. Samenwerking met informatici kan de ontwikkeling van tools faciliteren om beelden voor te bewerken, overbodige ruis te verwijderen en relevante kenmerken te extraheren om meerdere hypothesen te toetsen. Machine learning-benaderingen vereisen geschikte trainings- en testdatasets van voldoende omvang om robuuste modelprestaties te garanderen. Kleinere datasets kunnen worden geanalyseerd met eenvoudigere benaderingen voor beeldanalyse, zoals handmatige meting van relevante kenmerken met beeldanalyse-software zoals ImageJ24 of met beeldanalyse-software gekoppeld aan de microscoop25. Daarom kan overweging van het beoogde downstream-gebruik van de beelden de efficiëntie verbeteren bij het bepalen van het type en aantal op te nemen beelden, alsofmede de daaropvolgende analytische benadering.
Openbaarmakingen
De auteurs verklaren dat het onderzoek is uitgevoerd zonder enige commerciële of financiële relaties die als een potentieel belangenconflict kunnen worden beschouwd. De vermelding van handelsnamen of commerciële producten in deze publicatie is uitsluitend bedoeld om specifieke informatie te verstrekken en impliceert geen aanbeveling of goedkeuring door het Amerikaanse Ministerie van Landbouw (U.S. Department of Agriculture). De USDA is een aanbieder en werkgever die gelijke kansen biedt. Alle experimenten waren in overeenstemming met de huidige wetten van de Verenigde Staten, het land waarin zij zijn uitgevoerd.
Dankbetuigingen
De auteurs danken R. Ted Jeo voor zijn inzichten in eerder gerelateerd werk. Dank aan het University Imaging Center aan de University of Minnesota - Twin Cities voor het verstrekken van toegang tot software voor microscoopbeeldacquisitie en -analyse om de afbeeldingen voor publicatie voor te bereiden. Dit werk werd ondersteund door het United States Department of Agriculture – Agricultural Research Service [062-21500-001-000D] en de non-assistance cooperative agreement (No. 58-5062-2-016).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Aluminiumfolie | Boardwalk | 7106BW | 18 inch × 1.000 ft; gebruikt om lichtgevoelige kleuringsoplossingen tegen licht te beschermen |
| Calciumchloride-dihydraat, min. 99% | Sigma Life Science | C7902-500G | CAS-nr. 10035-04-8; reagens voor McDougall’s-buffer |
| Camera-software | Nikon | NIS-Elements AR 5.42.04 | 64-bits beeldverwerkingssoftware gebruikt voor beeldacquisitie en -analyse |
| Koolstofdioxidegas | Matheson | UN1013 | Utiliteitskwaliteit; gebruikt om anoxische condities te handhaven tijdens de preparatie en incubatie |
| Circulerend waterbad | Precisie | — | Temperatuurgecontroleerd circulerend waterbad gebruikt om monsters te handhaven op 39 °C |
| Standaard voor maïsstengels | University of Minnesota | Niet beschikbaar | Geoogst in het najaar van 2023 in St. Paul, Minnesota, VS; gemalen tot 1 mm en gebruikt als microbeels substraat |
| Dekglas | Thermo Scientific | 3419 | 24 mm × 30 mm, dikte nr. 1,5, 1 oz |
| Digital Sight 10 kleurenmicroscoopcamera met FX grootformaat CMOS-beeldsensor | Nikon | MQA20000 | Digitale kleurencamera gebruikt voor het verkrijgen van brightfield-microscopische beelden |
| Dissectiemicroscoop | Nikon | SMZ18 | Stereomicroscoop gebruikt voor het oriënteren en positioneren van dwarsneden van stengels |
| Dubbelzijdige plakband | SelloTape Office Vinyl Dubbelzijdige Tape | 4270 | 2 mm × 53 m; wordt gebruikt om dwarsdoorsneden van stengels op glazen objectglazen te fixeren |
| Elektronische weegschaal | EN | GH-202 | Analytische balans met een nauwkeurigheid van vier decimalen |
| Erlenmeyerkolf (125 mL) | Kimax | 25600 | 125 mL kolf; compatibel met stop No. 5 |
| Erlenmeyerkolf (25 ml) | Pyrex | 4980 | 25 mL kolf; compatibel met stop No. 0 |
| Ethanol (200 proof) | Fisher Scientific | 04-355-720 | Absoluut ethanol gebruikt voor de bereiding van kleuringsoplossingen en spoelingen voorafgaand aan de kleuring |
| Geëxtrudeerd polystyreen hard schuimisolatie | Owens Corning | 1407788 | 1 inch × 60,96 cm × 2 ft, R-5, 15 PSI schuimplaat; gebruikt ter ondersteuning van stengelinternodia tijdens het doorsnijden |
| Pincetten | Fisher Scientific | 10-316A | Laboratoriumpincetten gebruikt voor het hanteren van stengelsegmenten, objectglazen en gemonteerde coupes |
| Objectglazen | FisherBrand | 125503 | 25 mm × 75 mm × 1 mm; gebruikt voor het monteren van dwarsdoorsneden van stengels |
| Ronde kolf (6 L) | Pyrex | CLS43205L-4EA | 6 L glazen fles gebruikt voor de bereiding of hantering van grotere oplossingsvolumes |
| Glycerine, vloeistof van laboratoriumkwaliteit | Fisher Science Education | 525342C | CAS-nr. 56-81-5; glycerol gebruikt in montage- en bewaarlopplossingen |
| Dubbellaagse kaasdoek graad 50 | JINIOHEE Shop | B0FL27KXRN | 100% katoen, gebleekt wit; gebruikt voor het filteren van pensmateriaal en pensvloeistof |
| Maatcilinder (10 mL) | Pyrex | 700024 | Maatcilinder van 10 mL gebruikt voor het meten van vloeistofvolumes |
| Zoutzuur | Fisher | A1445-500 | CAS-nr. 7647-01-0; gebruikt in combinatie met floroglucinol voor de bereiding van Wiesner-kleuring |
| Industriële superpermanente marker | Sharpie | 13601 | Fijne punt; gebruikt om incubatiebuisjes te labelen met waterbestendige markeringen |
| L-cysteïne hydrochloride hydraat | Sigma-Aldrich | C121800-10G | CAS-nr. 345909-32-2; reduceermiddel gebruikt bij de bereiding van de incubatieoplossing |
| Pluisvrij weefsel | Kimberly-Clark | 34155 | 4,5 inch × 8,5 inch; gebruikt om overtollige vloeistof van slides te blotteren zonder vezels achter te laten |
| Laagprofiel microtoommes | Leica 819 | 63065-LP | Vervangend low-profile mes gebruikt voor de bereiding van uniforme dwarsdoorsneden van stengels |
| Magnesiumsulfaatheptahydraat | Fisher Chemical | M80-500 | CAS-nr. 10034-99-8; reagens voor McDougall’s-buffer |
| Magnetroerstaafje | Fisher Scientific | 03-411-783 | 76 mm × 12 mm; gebruikt voor het mengen van buffer- en inoculatieoplossingen |
| Adreslabels voor postverzending | Avery | 5167 | 1/2 inch × 1 3/4 inch; gebruikt voor identificatie van monsters en objectglaasjes |
| Kwast | Loew-Cornell | — | Serie 7000, nr. 3 rond; fijne penseel gebruikt voor het overbrengen en manipuleren van dwarsdoorsneden van stengels |
| Petrischalen met dekseels | Becton Dickinson laboratoriummateriaal | 81731119 | 60 mm × 15 mm; gebruikt voor tijdelijke bewaring van stامdwarsdoorsneden in ultrapuur water |
| Floroglucinol, 1,3,5-trihydroxybenzeen | Sigma-Aldrich | P3502-25G | CAS-nr. 108-73-6; reagens gebruikt voor het bereiden van de Wiesner-kleuring |
| Pipette (100 μL) | Gilson | P 1000; 767547M | Pipet met instelbaar volume, gebruikt voor het dispenseren van kleuringsoplossingen |
| Kunststof multifunctionele trechter | Nalgene | 10-437-23E | 150 mm; gebruikt voor overdracht van reagentia en filtratie |
| Polypropyleen bekerglas (4 L) | Nalgene | 1201-4000 | 4 L chemisch bestendige bekerglas gebruikt voor de bereiding en het mengen van inoculatie-oplossingen |
| Kaliumchloride | Fisher Chemical | P217-500 | CAS-nr. 7447-40-7; reagens voor McDougall’s-buffer |
| Schemessen | Personna | 66-0089 | 0,009 inch dik; gebruikt voor het handmatig trimmen van stengelmateriaal |
| Rutheniumrood, geammonieerd rutheniumoxychloride | Sigma | R-2751 | CAS-nr. 11103-72-3; histologische kleurstof gebruikt voor de visualisatie van pectinesubstantiën |
| Schaar | Fiskars | 1063071 | Algemene scharen gebruikt voor het knippen van tape, schuim en andere verbruiksartikelen |
| Kegelvormige centrifugebuizen met schroefdop (50 mL) | Corning | 430828 | Polypropyleen, niet-pyrogeen; gebruikt voor het vasthouden van monsters, incubatie, spoelen en opslag |
| Sledmicrotoom | Leica | 2000R | Glijmicrotoom gebruikt voor het prepareren van 100 μm-dikke dwarsdoorsneden van de stengel |
| Natriumbicarbonaat, ACS-grade | Fisher Chemical | S233-3 | CAS-nr. 144-55-8; reagens voor McDougall’s-buffer |
| Natriumchloride | Fisher Chemical | — | CAS-nr. 7647-14-5; reagens voor McDougall’s-buffer |
| Natriumhydroxide | Fisher Chemical | S318-500 | CAS-nr. 1310-73-2; gebruikt bij de bereiding van de reducerende oplossing |
| natriumfosfaat dibasisch watervrij (Na2HPO4) | Sigma Aldrich | S-9763 | CAS 7558-79-4 |
| Natriumsulfide anhydraat, ACS, min. 98,0% | Oakwood Chemicals | 245960 | CAS-nr. 1313-84-4; reduceermiddel gebruikt bij de bereiding van de incubatieoplossing |
| Spoonula laboratoriumlepel | Fisher Scientific | 14-375-10 | Laboratoriumspatel gebruikt voor het overbrengen van gepoederde reagentia |
| Roerplaat | Thermolyne van Sybron | 7200 | Magnetroerplaat gebruikt voor het mengen van buffer- en inoculatie-oplossingen |
| Spuit (60 mL) met brede naald | Monoject | 935401028 | 60 mL spuit met een dikwandige naald, gebruikt voor het toedienen van de inoculatie-oplossing |
| Reageerbuishouders | Thermo Scientific | 14-809-44 | Statieven gebruikt voor het organiseren en ondersteunen van 50 mL incubatiebuisjes |
| Thermometer | FisherBrand | 13201663 | Laboratoriumthermometer gebruikt om de temperatuur van de oplossing en het waterbad te controleren |
| Rechtopstaande microscoop | Nikon | Eclipse Ni | Rechte lichtveldsmicroscoop gebruikt voor visualisatie en beeldvorming van gekleurde dwarsneden van stengels |
| Hulppomp | Little Giant Pump Co. | 502203 | Model 2E-38N; 115 VAC, 60 Hz, 1,7 A; gebruikt om water te circuleren en een uniforme badtemperatuur te handhaven |
| Weegpapiertje | VWR Wetenschappelijke Producten | 12578-165 | Wegwerpweegpapier gebruikt voor het wegen en overbrengen van vaste reagentia en maïsstengelondergrond |
Referenties
- Cosgrove DJ. Growth of the plant cell wall. Nature Reviews Molecular Cell Biology. 2005;6(11):850-861.
- Moore KJ, Jung H-JG. Lignin and fiber digestion. Journal of Range Management. 2001;54(4):420-430.
- Barros J, Serk H, Granlund I, Pesquet E. The cell biology of lignification in higher plants. Annals of Botany. 2015;115(7):1053-1074.
- Jung HG, Engels FM. Alfalfa stem tissues: cell wall deposition, composition, and degradability. Crop Science. 2002;42(2):524-534.
- Jung HG, Lamb JFS. Stem morphological and cell wall traits associated with divergent in vitro neutral detergent fiber digestibility in alfalfa clones. Crop Science. 2006;46(5):2054-2061.
- Engels FM, Jung HG. Alfalfa stem tissues: cell-wall development and lignification. Annals of Botany. 1998;82(5):561-568.
- Akin DE. Section to slide technique for study of forage anatomy and digestion. Crop Science. 1982;22(2):444-446.
- Jung HG, Deetz DA. Cell wall lignification and degradability. In: Jung HG, Buxton DR, Hatfield RD, Ralph J, eds. Forage Cell Wall Structure and Digestibility. American Society of Agronomy, Crop Science Society of America, Soil Science Society of America; Madison, WI; 1993:315-346.
- Blaschek L, et al. Cellular and genetic regulation of coniferaldehyde incorporation in lignin of herbaceous and woody plants by quantitative Wiesner staining. Frontiers in Plant Science. 2020;11:109.
- Blaschek L, et al. Different combinations of laccase paralogs nonredundantly control the amount and composition of lignin in specific cell types and cell wall layers in Arabidopsis. The Plant Cell. 2023;35(2):889-909.
- Nevins DJ. Analysis of forage cell wall polysaccharides. In: Jung HG, Buxton DR, Hatfield RD, Ralph J, eds. Forage Cell Wall Structure and Digestibility. American Society of Agronomy, Crop Science Society of America, Soil Science Society of America; Madison, WI; 1993:105-132.
- Xu Z, Heuschele DJ, Lamb JFS, Jung H-JG, Samac DA. Improved forage quality in alfalfa (Medicago sativa L.) via selection for increased stem fiber digestibility. Agronomy. 2023;13(3):770.
- Pradhan Mitra P, Loqué D. Histochemical staining of Arabidopsis thaliana secondary cell wall elements. Journal of Visualized Experiments. 2014;(87):51381.
- De Micco V, Aronne G. Combined histochemistry and autofluorescence for identifying lignin distribution in cell walls. Biotechnic & Histochemistry. 2007;82(4–5):209-216.
- Kraus JE, et al. Astra Blue and Basic Fuchsin double staining of plant materials. Biotechnic & Histochemistry. 1998;73(5):235-243.
- Ursache R, Andersen TG, Marhavý P, Geldner N. A protocol for combining fluorescent proteins with histological stains for diverse cell wall components. The Plant Journal. 2018;93(2):399-412.
- Baldacci-Cresp F, et al. A rapid and quantitative safranin-based fluorescent microscopy method to evaluate cell wall lignification. The Plant Journal. 2020;102(5):1074-1089.
- Casero PJ, Knox JP. The monoclonal antibody JIM5 indicates patterns of pectin deposition in relation to pit fields at the plasma-membrane-face of tomato pericarp cell walls. Protoplasma. 1995;188(1-2):133-137.
- Pesquet E, Cesarino I, Kajita S, Pawlowski K. Physiological roles of lignins – tuning cell wall hygroscopy and biomechanics. New Phytologist. 2025;248(6):2674-2706.
- Jung HG, Engels FM. Alfalfa stem tissues: rate and extent of cell-wall thinning during ruminal degradation. NJAS: Wageningen Journal of Life Sciences. 2001;49(1):3-13.
- Yeung EC. A beginner’s guide to the study of plant structure. Tested Studies for Laboratory Teaching. 1998;19:125-142.
- Jensen, W.A. Botanical Histochemistry: Principles and Practice. Freeman W.H. & Co. San Francisco, CA. (1962).
- Ruzin, SE. Plant Microtechnique and Microscopy. Oxford University Press; New York, NY; 1999.
- Gronwald JW, Bucciarelli B. Comparison of stem morphology and anatomy of two alfalfa clonal lines exhibiting divergent cell wall composition. Journal of the Science of Food and Agriculture. 2013;93(11):2858-2863.
- Dai R, et al. Overexpression MsJAR1 gene increased lateral branches and plant height in alfalfa (Medicago sativa L.). Scientific Reports. 2025;15(1):16956.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar