Dit protocol beschrijft een reproduceerbare methode voor het isoleren en kweken van primaire gladde spiercellen uit de aorta van muizen uit thoracale en abdominale regio's. De methode levert levensvatbare cellen op die geschikt zijn voor in vitro studies naar vasculaire remodellering en aneurysma-gerelateerde biologie.
Methodenartikel
Isolatie en kweek van primaire murine aortale gladde spiercellen voor In vitro studies relevant voor vasculaire remodellering en de biologie van aortaneurysma's
In dit artikel
Samenvatting
Samenvatting
De isolatie en cultivatie van primaire aortale gladde spiercellen (SMCs) bieden een waardevolle aanpak voor het onderzoeken van cellulaire mechanismen die ten grondslag liggen aan vasculaire aandoeningen, waaronder aortaneurysma's. Het huidige artikel beschrijft een gedetailleerd en geoptimaliseerd protocol voor de isolatie en cultivatie van muis-aortale SMC's uit thoracale en abdominale aortasegmenten. De huidige procedure omvat zorgvuldige aortadissectie, verwijdering van het omringende weefsel en een tweestaps enzymatische digestie met collagenase, elastase en soja-trypsineremmer, gevolgd door mechanische dissociatie en cel-expansie onder gedefinieerde kweekcondities. Er wordt bijzondere nadruk gelegd op stappen die de celopbrengst, zuiverheid en reproduceerbaarheid verbeteren, waaronder de verwijdering van de adventitia en een gecontroleerde timing van de digestie. Met deze aanpak kunnen de primaire SMC's succesvol worden geïsoleerd en uitgebreid, waarbij ze een karakteristieke morfologie en groeipatronen vertonen. Dit protocol biedt een reproduceerbare en aanpasbare methode voor het genereren van primaire aortale SMC's en dient als platform voor in vitro studies die relevant zijn voor vasculaire remodellering en de biologie van aortaneurysma's.
Inleiding
Gladde spiercellen (SMC's) van de aorta zijn essentiële componenten van de vaatwand en dragen bij aan zowel de structurele integriteit als de functionele regulatie van de aorta. In gezonde vaten behouden SMC's een contractiel fenotype dat wordt gekenmerkt door de expressie van contractiele eiwitten zoals α-smooth muscle actin (α-SMA) en glad spiermyosine zware keten (MYH11)1,2,3. Dit fenotype ondersteunt de vasculaire tonus en behoudt de organisatie van de extracellulaire matrix. Echter, bij pathologische aandoeningen zoals een abdominaal aorta-aneurysma (AAA) ondergaan SMC's een fenotypische modulatie naar een synthetische en pro-inflammatoire toestand1,2,3. Deze overgang is geassocieerd met verhoogde proliferatie, secretie van cytokinen en productie van matrix-afbrekende enzymen, wat uiteindelijk bijdraagt aan de verzwakking van de aortawand4,5.
Diermodellen, waaronder de door angiotensine II (Ang II) geïnduceerde vorming van aorta-aneurysma's, hebben het begrip van de pathogenese van AAA aanzienlijk verbeterd1,6,7,8,9,10,11. Desalniettemin maken deze modellen een precieze manipulatie van cellulaire pathways of directe observatie van SMC-specifieke mechanismen niet mogelijk. In vitro systemen met primaire SMC's bieden een complementaire benadering, waarmee gedetailleerd onderzoek naar signaleringspaden, genregulatie en cellulaire responsen onder gecontroleerde omstandigheden mogelijk wordt12.
Ondanks hun bruikbaarheid is de isolatie van primaire murine aortaire SMC's technisch uitdagend. De kleine omvang van de murine aorta, de aanwezigheid van omringend vet- en bindweefsel en het risico op contaminatie door adventitiële fibroblasten kunnen allemaal de zuiverheid van de cellen in gevaar brengen. Daarnaast moet de enzymatische digestie zorgvuldig worden gecontroleerd om een balans te vinden tussen weefseldissociatie en het behoud van de celviabiliteit. Variabiliteit in deze stappen leidt vaak tot inconsistente resultaten tussen experimenten en laboratoria.
Er zijn verschillende protocollen gepubliceerd die de isolatie en kweek van primaire murine aortale gladde spiercellen beschrijven, waarvan de meeste vertrouwen op de volledige mechanische verwijdering van de adventitia voorafgaand aan de enzymatische digestie en zich primair richten op volledige aorta's of thoracale aortasegmenten13,14. Het huidige protocol bouwt voort op deze methoden door verschillende technische verfijningen te integreren, waaronder een korte enzymatische voor-digestiestap om de scheiding van de adventitiële en mediale lagen te vergemakkelijken vóór de volledige weefseldissociatie, gestandaardiseerde digestiecondities met intermitterende zachte mechanische dissociatie, en een workflow voor de afzonderlijke isolatie en kweek van thoracale (THX) en abdominale (ABD) aortale gladde spiercellen. Samen zijn deze verfijningen bedoeld om de consistentie en reproduceerbaarheid van de weefselverwerking te verbeteren, terwijl ze regio-specifieke studies naar vasculaire remodellering en aneurysmabiologie vergemakkelijken. De resulterende SMC-kweken zijn geschikt voor een breed scala aan downstream toepassingen, waaronder gene silencing, farmacologische studies en mechanistische onderzoeken die relevant zijn voor vasculaire remodellering en aneurysmabiologie. Hoewel primaire SMC's geïsoleerd uit niet-zieke aorta's inherent geen aneurysmale fenotypen nabootsen, bieden ze een gecontroleerd in vitro systeem voor het onderzoeken van cellulaire paden die betrokken zijn bij de ontwikkeling van aneurysma's na gerichte experimentele manipulatie.
Protocol
Voor de hieronder beschreven procedure werden volwassen vrouwelijke C57BL/6J-muizen van 8 tot 10 weken oud met een gewicht van 18–20 g gebruikt. Er werden twee muizen per isolatie gebruikt. Alle dierprocedures werden uitgevoerd in overeenstemming met de richtlijnen van het Institutional Animal Care and Use Committee (IACUC) aan de University of Kentucky en werden goedgekeurd onder protocol nr. 2022-4153. De details van alle gebruikte reagentia en apparatuur zijn vermeld in de Tabel met Materialen. Een schematisch overzicht van de volledige isolatie- en kweekworkflow is weergegeven in Figuur 1.
WAARSCHUWING: Ketamine en xylazine zijn gecontroleerde stoffen en moeten worden behandeld, bewaard en afgevoerd in overeenstemming met de institutionele richtlijnen en de geldende regelgeving. Collagenase type II en elastase zijn proteolytische enzymen die huid-, oog- en luchtweginirritatie kunnen veroorzaken. Trypaanblauw is een gevaarlijke kleurstof en moet worden gehanteerd met geschikte persoonlijke beschermingsmiddelen, waarbij contact met de huid en ogen moet worden vermeden. Alle gevaarlijke reagentia moeten worden behandeld en afgevoerd in overeenstemming met de institutionele veiligheidsrichtlijnen en de instructies van de fabrikanten.
1. Bereiding van reagentia en kweekmedia
- Bereid op de dag van isolatie 10 mL verse enzymdigestie-oplossing voor in een steriele conische buis van 15 mL:
- Voeg 10 mg collagenase type II toe (eindconcentratie van 1 mg/mL) (zie Materialentabel).
- Voeg 10 mg soja-trypsine-inhibitor toe (eindconcentratie van 1 mg/mL) (zie Materialentabel).
- Voeg 71 µL elastase-suspensie toe (eindconcentratie van 0,744 U/mL) (zie Materialentabel).
- Bereid de oplossing in HBSS met calcium en magnesium zonder fenolrood (zie Materialentabel).
- Voeg 100 µL penicilline/streptomycine toe (1% van het eindvolume) (zie Materialentabel).
- Meng de oplossing grondig en steriliseer deze door filtratie met een nylon spuitfilter van 0,2 µm (zie Materialentabel).
- Bereid compleet SMC-kweekmedium (500 mL):
- Voeg 385 mL Dulbecco’s Modified Eagle Medium/Nutrient Mixture F-12 (DMEM/F12) zonder fenolrood (zie Materialentabel) toe als basismedium.
- Suppleer met 100 mL met houtskool/dextran behandeld foetaal runderserum (20% van het eindvolume) (zie Materialentabel).
- Voeg 10 mL penicilline/streptomycine toe (2% van het eindvolume) (zie Materialentabel).
- Voeg 5 mL amfotericine B toe (1% van het eindvolume) (zie Materialentabel).
- Steriliseer het medium door filtratie en bewaar dit bij 4 °C.
- Warm alle reagentia voor tot 37 °C vóór gebruik.
2. Voorbereiding voor weefselverwerking
- Verdeel de enzymdigestie-oplossing vooraf in gelijke delen over 4 wells (elk 2,5 mL) van een 6-well kweekplaat en warm deze voor in de incubator bij 37 °C met 5% CO₂ vóór de weefselverwerking. Twee putjes moeten worden aangeduid als 'THX' en twee als 'ABD' voor de aortasegmenten. Meerdere segmenten uit dezelfde anatomische regio kunnen in één enkele put worden verwerkt.
- Bereid 2 aparte kweekschalen voor (zie Materiaallijst) met volledig SMC-kweekmedium en label deze als THX en ABD.
- Voorverwarm de kweekschaaltjes met medium in een bevochtigde incubator.
- Bereid vooraf 20 mL steriele HBSS voor voor vasculaire perfusie en weefselverwerking.
- Bereid 2 extra kweekschalen voor met elk 3 mL HBSS voor het opeenvolgende reinigen van de geïsoleerde aorta's.
- Bereid gelabelde conische buizen van 15 ml voor (zie Tabel van materialen) bevattende elk 5 mL HBSS voor tijdelijke bewaring en scheiding van de aortasegmenten van THX en ABD.
- Steriliseer chirurgische instrumenten tussen de dieren door detergent aan te brengen, te spoelen met gedestilleerd water, te desinfecteren met 70% ethanol en te steriliseren met een kralensterilisator (zie Tabel met Materialen).
3. Voorbereiding van het dier en dissectie van de aorta
- Anestheseer de muizen door intraperitoneale (IP) injectie van ketamine (300 mg/kg) en xylazine (30 mg/kg) (zie Materiaaloverzicht), zoals goedgekeurd onder het University of Kentucky IACUC-protocol 2022-4153 voor terminale procedures.
- Bevestig de adequate diepte van de anesthesie door de afwezigheid van een reflexrespons op het knijpen in de teen.
- Steriliseer het operatieveld met 70% ethanol.
- Euthanaseer de muizen onder diepe chirurgische anesthesie door exsanguinatie via hartpunctie, gevolgd door transcardiale perfusie met HBSS, in overeenstemming met de institutionele en AVMA-richtlijnen.
- Open de borstholte en voer een hartpunctie uit om bloed te verzamelen.
- Perfuseer de vasculatuur via de linker ventrikel met behulp van een spuit van 10 mL voorzien van een 25-gauge naald om langzaam 10 mL steriele HBSS te injecteren. Een perfusiesnelheid van ongeveer 0,5 mL/s wordt aanbevolen om een efficiënte verwijdering van resident bloed te garanderen.
- Verwijder voorzichtig de omliggende organen (lever, longen, milt, maagdarmkanaal, nieren). Laat een stuk van het diafragma verbonden blijven met de aorta.
- Isoleer de aorta van de aortawortel tot de iliacaal bifurcatie met het intacte diafragma. Het diafragma dient als de anatomische grens tussen de THX- en ABD-regio's (Figuur 2B).
- Overbreng de aorta onmiddellijk naar steriele HBSS (Figuur 2A).
4. Reiniging en segmentatie van de aorta
- Plaats de steriele kweekschaal met de aorta onder een dissectiemicroscoop (zie Tabel met Materialen).
- Verwijder voorzichtig vetweefsel en bindweefsel met een fijne pincet (zie Tabel met Materialen).
- Scheid de aorta in THX- en ABD-segmenten.
OPMERKING: Het THX-segment loopt van het gebied van de aorta net boven het diafragma tot aan de aortawortel, terwijl het ABD-segment loopt van het gebied van de aorta net onder het diafragma tot aan de iliaca-bifurcatie (Figuur 2B). - Overbreng de gereinigde segmenten naar afzonderlijke conische buisjes van 15 mL met vers HBSS voor verdere verwerking.
5. Enzymatische digestie en celisolatie
- Incubeer de aortasegmenten in de enzymoplossing bij 37 °C gedurende 8–10 min.
- Verwijder de aortasegmenten uit de enzymoplossing.
- Breng de segmenten over naar afzonderlijke kweekschalen met compleet SMC-medium, bestemd voor THX- en ABD-monsters.
- Verwijder de adventitialaag van de aorta met grove en fijne pincetten. De volledige verwijdering van de adventitia is bevestigd wanneer het buitenoppervlak van de aorta er glad en doorschijnend uitziet, zonder zichtbaar resterend bindweefsel of vetweefsel (Figuur 2C).
- Breng de aortasegmenten over naar een verse enzymoplossing en hak de medialaag in kleine fragmenten direct in de oplossing (Figuur 3A).
- Incubeer de weefselfragmenten bij 37 °C in een bevochtigde incubator met 5% CO₂ gedurende 1 u.
- Voer een zachte mechanische dissociatie uit door ongeveer 10–15 keer op en neer te pipetteren om de celvrijgave te vergemakkelijken (Figuur 3B).
- Herhaal de mechanische dissociatiestap met intervallen van 30–60 min tijdens de voortgezette incubatie voor een totale digestietijd van 2–3 u of totdat een homogene celsuspensie is bereikt.
6. Celverzameling, wassen, uitplaten en initiële cultuur
- Overbreng de enzymdigestie-oplossing met de gedissocieerde cellen naar afzonderlijke conische buizen van 15 mL (zie Tabel met Materialen) die bestemd zijn voor THX- en ABD-monsters.
- Spoel elke digestieput uit met 5 mL kweekmedium en voeg dit samen met de overeenkomstige buizen.
- Centrifugeer de celsuspensie bij 400 × g gedurende 5 min bij kamertemperatuur.
- Herhaal de centrifugatie indien de pelletvorming onvoldoende is.
- Verwijder het supernatant zonder de celpellet te verstoren (Figuur 3C).
- Resuspendeer de cellen in 5 mL vers kweekmedium en voer een extra wasstap uit, gevolgd door centrifugatie onder dezelfde omstandigheden.
- Verwijder het supernatant en resuspendeer de uiteindelijke celpellet in een geschikt volume (meestal 6 mL) compleet SMC-kweekmedium.
- Plateer de volledige celsuspensie verkregen uit het thoracale of abdominale aortasegment in twee putjes van een 6-wells kweekplaat (3 mL gesuspendeerd medium per putje) en incubeer bij 37 °C met 5,0% CO₂. De cellen worden direct na isolatie geplateerd zonder voorafgaande celtelling; er wordt in dit stadium dus geen streefwaarde voor de zaaidichtheid gebruikt.
- Houd de culturen 5–7 dagen ongestoord om celhechting en initiële expansie mogelijk te maken.
PAUSEERPUNT: Na het plateren kunnen de culturen 5–7 dagen in de incubator worden bewaard voordat men overgaat tot de stappen voor celonderhoud en expansie in Sectie 7.
7. Onderhoud en expansie van cellen
- Vervang het kweekmedium elke 3–4 dagen.
- Controleer regelmatig de celmorfologie en confluentie.
- Passageer de cellen wanneer ze een confluentie van ongeveer 80–90% bereiken.
- Aspireer het kweekmedium en was de cellen met voorverwarmde fosfaatgebufferde zoutoplossing (PBS) (zie Tabel met materialen).
- Voeg 0,05% trypsine-EDTA toe en incubeer gedurende 5–10 min bij 37 °C.
- Ga verder wanneer 80%–90% van de cellen is losgekomen.
- Tik voorzichtig tegen de kweekplaat om het loskomen te vergemakkelijken.
- Voeg een gelijk volume compleet kweekmedium toe om de trypsine te neutraliseren.
- Pipetteer voorzichtig om de resterende cellen los te maken.
- Overbreng de celsuspensie naar conische buizen en centrifugeer 5 min bij 400 × g.
- Verwijder het supernatant en resuspendeer de celpellet in vers kweekmedium.
- Zaai de cellen uit met een splitratio van 1:2 (of de gewenste experimentele dichtheid) en incubeer bij 37 °C met 5% CO₂. Laat de cellen 24–48 u ongestoord hechten.
OPMERKING: Gebruik voor vervolgexperimenten cellen tussen passage 3 en 7 (P3–P7) om kweek-geïnduceerde fenotypische drift te minimaliseren. Cellen na passage 7 zijn vatbaarder voor fenotypische drift en kunnen een gewijzigde morfologie en functie vertonen.
8. Validatie via α-SMA immunofluorescentiekleuring
- Kweek cellen op materiaal dat geschikt is voor fluorescentiemicroscopie.
- Zaai cellen uit in een 96-well plaat met optische bodem tegen een dichtheid van 15.000 cellen per well. Laat de cellen groeien tot de gewenste confluentie.
- Bereiding van cellen voor fixatie
- Aspireer het kweekmedium van de adherente cellen. Was 3 keer met 200 µL per well Tris-gebufferde zoutoplossing met 0,1% Tween 20 (TBS-T) gedurende 5 min per wasbeurt, en aspireer vervolgens met een vacuümsysteem in de biologische veiligheidskast.
- Fixatie van cellen
- Voeg 200 µL per well 4% paraformaldehyde (PFA) in 1x PBS toe. Incubeer 10–20 min bij kamertemperatuur en aspireer vervolgens.
- Permeabilisatie
- Voeg 200 µL per well 0,1% Triton X-100 in 1x PBS toe. Incubeer 10–15 min bij kamertemperatuur en aspireer vervolgens.
- Blokkeren van aspecifieke binding
- Was de cellen 3 keer met 200 µL per well TBS-T gedurende 5 min per wasbeurt. Voeg 200 µL per well 5% runderserumalbumine (BSA) in TBS-T toe.
- Plaats de plaat op een orbitale schudder bij ongeveer 200 rpm gedurende 1 u bij kamertemperatuur.
- Kleuring met primair antilichaam
- Bereid het primaire α-SMA-antilichaam in een verdunning van 1:1.000 in 5% BSA in TBS-T.
- Haal de plaat van de orbitale schudder en aspireer de blokkeringsoplossing uit de wells die bestemd zijn voor α-SMA-kleuring. Laat bij de controle met alleen secundair antilichaam het primaire antilichaam weg en houd de controlewell in 5% BSA in TBS-T.
- Voeg 200 µL per well van het verdunde primaire α-SMA-antilichaam toe aan de experimentele wells. Incubeer de experimentele wells en de controle-wells met alleen secundair antilichaam overnacht bij 4 °C op een zacht draaiende orbitale schudder.
- Kleuring met secundair antilichaam
- Bereid het fluorescerende secundaire antilichaam in een verdunning van 1:2.500 in TBS-T met 0,1% Tween 20.
- Haal de plaat van de orbitale schudder en aspireer alle wells.
- Was alle wells 3 keer met 200 µL per well TBS-T gedurende 5 min per wasbeurt en aspireer vervolgens.
- Voeg 200 µL per well van het verdunde fluorescerende secundaire antilichaam toe aan alle wells, inclusief de controle met alleen secundair antilichaam.
- Bescherm de plaat tegen licht en incubeer op een orbitale schudder bij ongeveer 200 rpm gedurende 1 u bij kamertemperatuur.
- Kernkleuring en fluorescentie-imaging
- Bereid een 2 µg/mL oplossing van Hoechst 33342.
- Was de cellen 3 keer met 200 µL per well TBS-T gedurende 5 min per wasbeurt. Voeg voldoende Hoechst 33342-kleuringsoplossing toe om de cellen te bedekken en incubeer 10 min bij kamertemperatuur, beschermd tegen licht.
- Neem fluorescentiebeelden op met een geïnverteerde fluorescentiemicroscoop bij een 20x vergroting voor de α-SMA-gekleurde THX- en ABD-culturen en bij een 10x vergroting voor de controles met alleen secundair antilichaam, met 385 nm excitatie voor Hoechst 33342 en 475 nm excitatie voor het fluorofoor-geconjugeerde secundaire antilichaam. Controles met alleen secundair antilichaam werden bij 10x afgebeeld om een voldoende aantal kernen in het gezichtsveld op te nemen.
- Kwantificatie van α-SMA-positieve cellen.
- Evalueer α-SMA-positiviteit door Hoechst-positieve kernen te tellen die geassocieerd zijn met cellen die een duidelijke α-SMA-positieve spoelvormige cytoplasmatische kleuring vertonen. Scoor cellen met een ambigu of niet-gedefinieerd fluorescent signaal conservatief als α-SMA-negatief.
- Bereken de α-SMA-positiviteit als het aantal α-SMA-positieve cellen gedeeld door het totale aantal getelde Hoechst-positieve kernen over de geëvalueerde microscopische velden, vermenigvuldigd met 100.
Resultaten
Binnen 24–48 u na isolatie begint een subset van de cellen aan het cultuuroppervlak te hechten en uit te spreiden, waarbij ze aanvankelijk een afgeronde morfologie vertonen. De celhechting kan in vroege tijdstappen variabel zijn, en culturen kunnen schaars lijken vanwege het beperkte aantal levensvatbare cellen dat tijdens de initiële isolatie is teruggewonnen. Tegen dag 3–5 nemen de adherente cellen geleidelijk een karakteristieke spoelvormige, langgerekte morfologie aan die typisch is voor vasculaire gladde spiercellen (SMCs), en beginnen ze te prolifereren, waarbij kleine clusters worden gevormd. Een schematisch overzicht van de experimentele workflow, inclusief aorta-isolatie, segmentatie, enzymatische digestie, mechanische dissociatie en het uitplaten van cellen, is geïllustreerd in Figuur 1.
Representatieve afbeeldingen van de isolatie van de aorta, anatomische segmentatie in THX- en ABD-regio's en verwijdering van de adventitiale laag worden getoond in Figuur 2. De THX- en ABD-regio's van de aorta werden onderscheiden op basis van de anatomische locatie ten opzichte van het diafragma, zoals aangegeven in Figuur 2B. Representatieve afbeeldingen van enzymatische digestie, mechanische dissociatie en de vorming van een zichtbare celpellet na centrifugatie worden getoond in Figuur 3.
Het celgetal en de levensvatbaarheid werden bij passage 3 beoordeeld met behulp van Trypan blue uitsluiting (1:1) en een Countess Automated Cell Counter. Gegevens werden verkregen uit 3 onafhankelijke isolaties met in totaal 6 muizen (2 muizen per isolatie). THX-culturen hadden een gemiddeld celgetal van 5,10 × 10⁵ ± 7,81 × 10⁴ cellen (bereik, 4,20 × 10⁵–5,60 × 10⁵) en een levensvatbaarheid van 66,33 ± 18,18% (bereik, 46–81%). ABD-culturen hadden een gemiddeld celgetal van 4,63 × 10⁵ ± 2,31 × 10⁴ cellen (bereik, 4,50 × 10⁵–4,90 × 10⁵) en een levensvatbaarheid van 61,66% ± 12,01% (bereik, 50%–74%) (Tabel 1).
Tegen dag 5–7 bereiken culturen doorgaans een confluentie van ongeveer 70%–90%, waarbij een dichte en relatief uniforme monolaag wordt gevormd. De cellen richten zich gewoonlijk in parallelle oriëntaties, wat hun contractiele afkomst weerspiegelt. Er kunnen verschillen in proliferatiesnelheid en celdichtheid worden waargenomen tussen THX- en ABD-SMC's, wat consistent is met de bekende regionale heterogeniteit van de aorta. Representatieve fasecontrastbeelden van de morfologie van primaire SMC's uit THX- en ABD-aortasegmenten bij lage (10x) en hogere (20x) vergroting worden getoond in Figuur 4.
SMC's vertoonden de karakteristieke langgerekte, spoelvormige morfologie, een georganiseerde parallelle uitlijning bij confluentie en een uniform groeipatroon, terwijl fibroblast-achtige cellen doorgaans een vlakkere, onregelmatige morfologie vertonen met een minder georganiseerde oriëntatie en heterogene spreiding. Deze morfologische en groeikenmerken bieden een praktische en reproduceerbare methode voor het identificeren van SMC-populaties in primaire culturen bij afwezigheid van moleculaire validatie. Succesvolle isolatie wordt gekenmerkt door vroege celadhesie binnen 24–48 h, progressieve verwerving van een spoelvormige morfologie en de vorming van een confluente monolaag tegen dag 5–7. Cellen lijnen zich bij een hogere confluentie doorgaans uit in parallelle rijen, wat consistent is met het gladspierfenotype. Suboptimale resultaten kunnen bestaan uit slechte celadhesie, een lage celopbrengst of de aanwezigheid van afgeplatte, onregelmatig gevormde cellen, wat kan wijzen op onvolledige digestie, overmatige enzymatische blootstelling of contaminatie met celpopulaties die geen gladspiercellen zijn.
Een consistente cellevensvatbaarheid en minimale contaminatie door fibroblast-achtige cellen ondersteunen bovendien de succesvolle isolatie. Om de identiteit van de SMC's verder te valideren, werden representatieve primaire culturen gekleurd met immunofluorescentie voor α-SMA (Figuur 5>) volgens de procedure beschreven in Sectie 8. Zowel de THX- als de ABD-culturen vertoonden het karakteristieke filamenteuze α-SMA-kleuringspatroon dat wordt verwacht bij vasculaire SMC's. Kwantificering over vier microscopische velden identificeerde 69 α-SMA-positieve cellen onder de 72 geëvalueerde Hoechst-positieve cellen, wat overeenkomt met een algehele α-SMA-positiviteit van 95,8% (95% BI, 88,5%–98,9%). Specifiek waren 20/20 THX-cellen en 49/52 ABD-cellen α-SMA-positief. Figuur 5 toont representatieve velden van de geëvalueerde cellen.
Tijdens vroege passages behouden de cellen een stabiele morfologie en proliferatiecapaciteit. Bij langdurige kweek kunnen cellen echter geleidelijk kenmerken van fenotypische modulatie vertonen, waaronder verhoogde spreiding, verminderde uitlijning en veranderde groeipatronen.
Onder deze omstandigheden zijn primaire SMC-culturen geschikt voor downstream toepassingen, waaronder gene knockdown, farmacologische behandelingen en mechanistische studies naar pathways die betrokken zijn bij vasculaire remodellering en de ontwikkeling van aort aneurysma's.
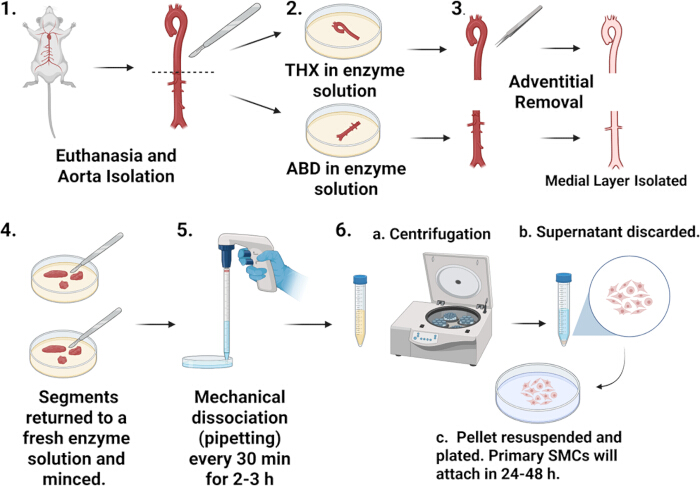
Figuur 1: Schematisch overzicht van de workflow. Een schematische weergave van de primaire workflow voor de isolatie van gladde spiercellen uit de aorta van muizen. Paneel 1 toont de euthanasie en isolatie van de aorta. Paneel 2 toont de scheiding van THX- en ABD-aortasegmenten in een enzymdigestie-oplossing. Paneel 3 toont de verwijdering van de adventitia en isolatie van de mediaalste laag. Paneel 4 toont het terugplaatsen van de weefselsegmenten in een verse enzymoplossing en het fijnmalen. Paneel 5 toont mechanische dissociatie door pipetteren elke 30 min gedurende 2–3 h. Paneel 6 toont het herstel en uitplaten van de cellen, inclusief 6a centrifugatie, 6b verwijdering van het supernatant en 6c resuspensie van het pellet en uitplaten. Klik hier om een grotere versie van deze figuur te bekijken.
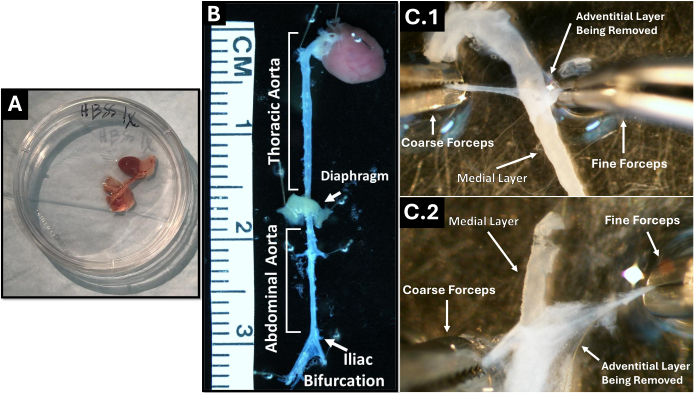
Figuur 2: Isolatie en preparatie van segmenten van de muisaorta. (A) Geïsoleerde volledige aorta geplaatst in een kweekschaal. (B) Gereinigde aorta met anatomische referentiepunten die de THX- en ABD-regio's aangeven, inclusief het diafragma en de iliacabifurcatie. (C) Representatieve afbeeldingen van de verwijdering van de adventitia uit THX- (boven) en ABD-segmenten (onder) met behulp van fijne en grove pincetten, waarbij de onderliggende mediale laag zichtbaar wordt, welke essentieel is voor de isolatie van gladde spiercellen. Klik hier om een grotere versie van deze figuur te bekijken.
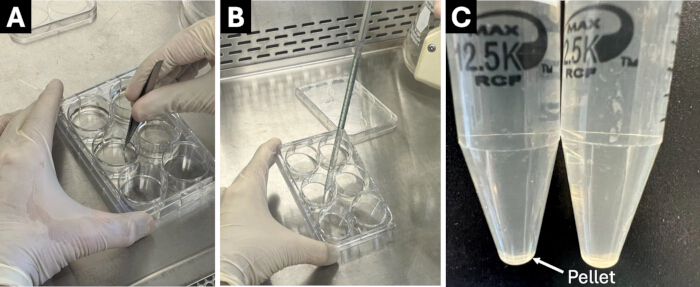
Figuur 3: Enzymatische digestie en mechanische dissociatie van aortawefsel. (A) Na verwijdering van de adventitiale laag wordt de mediale laag overgebracht naar een verse enzymoplossing en fijngehakt met een kleine schaar. (B) Voorbeeld van mechanische dissociatie van aortaframenten via voorzichtig pipetteren. (C) Na enzymatische digestie en centrifugatie is een zichtbare celpellet waarneembaar. Klik hier om een grotere versie van deze figuur te bekijken.
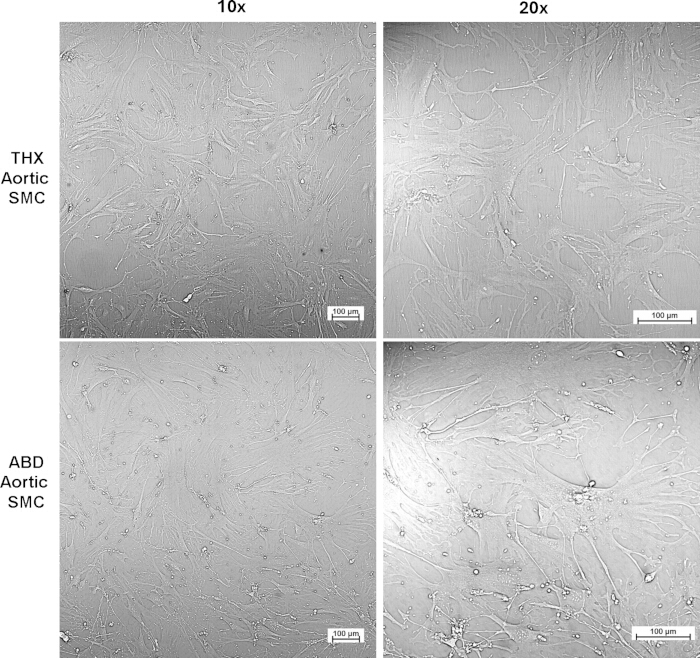
Figuur 4: Representatieve morfologie van primaire murine aortale gladde spiercellen (SMC's). Primaire SMC's, geïsoleerd uit thoracale en abdominale aortasegmenten, werden gekweekt onder standaardcondities en gefotografeerd bij passage 4. Representatieve fasecontrastbeelden worden getoond bij lage (10x) en hogere (20x) vergroting. De cellen vertonen de karakteristieke spoelvormige, verlengde morfologie en uitlijning die consistent zijn met een contractiel SMC-fenotype. Verschillen in celdichtheid en organisatie kunnen worden waargenomen tussen SMC's afgeleid van THX en ABD, wat de regionale heterogeniteit weerspiegelt. Schaalbalken = 100 µm. Klik hier om een grotere versie van deze figuur te bekijken.
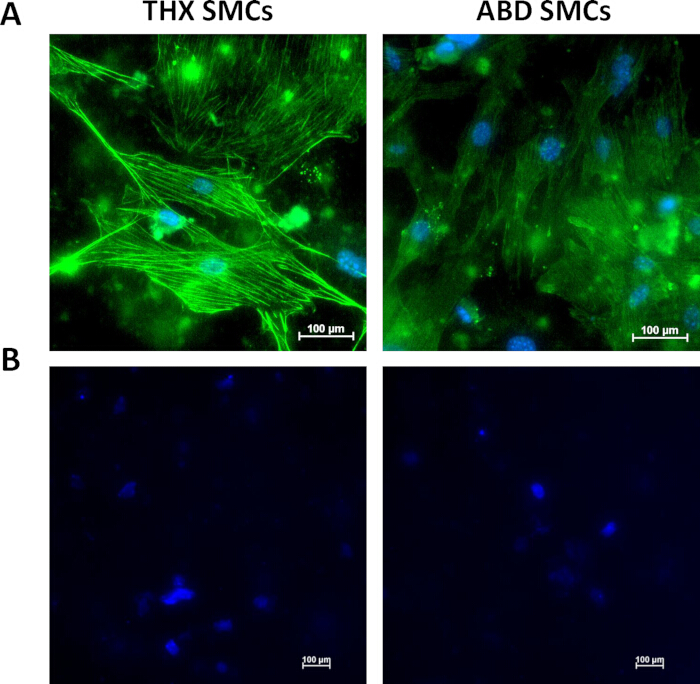
Figuur 5: Immunofluorescentie-validatie van primaire murine aortale SMC's. (A) Representatieve immunofluorescentiebeelden van primaire SMC's geïsoleerd uit de THX- (links) en ABD-aorta (rechts) en gekleurd voor α-SMA (groen). Kernen werden tegengekleurd met Hoechst 33342 (blauw). Beelden zijn vastgelegd bij een 20x vergroting. (B) Representatieve controlebeelden met enkel secundaire antilichamen van primaire THX- (links) en ABD-SMC's (rechts), verwerkt zonder het α-SMA primaire antilichaam en tegengekleurd met Hoechst 33342 (blauw). Beelden zijn vastgelegd bij een 10x vergroting. Kwantificatie over vier microscopische velden identificeerde 69/72 cellen als α-SMA positief (95,8%). Schaalbalken = 100 µm. Klik hier om een grotere versie van deze figuur te bekijken.
| Celgetal en levensvatbaarheid van primaire muizen-aortale gladde spiercelculturen | |||
| Aortasegment | Onafhankelijke isolaties, n | Celgetal (gemiddelde) ± SD)* | Cellevensvatbaarheid (gemiddelde ± SD)† |
| Bedankt | 3 | 5,10 x 10⁵ ± 7,81 x 10⁴ cellen | 66.33 ± 18.18 % |
| ABD | 3 | 4,63 x 10⁵ ± 2,31 x 10⁴ cellen | 61.66 ± 12.01 % |
| Celgetallen werden bij passage 3 verkregen uit 3 onafhankelijke isolaties. | |||
| †Het celgetal en de levensvatbaarheid werden bepaald via trypaanblauw-exclusie in een verhouding van 1:1 met behulp van een Countess Automated Cell Counter. | |||
Tabel 1: Celgetal en levensvatbaarheid van primaire muizen-aortale gladde spiercelculturen
| Stap | Probleem | Mogelijke oorzaak | Aanbevolen oplossing |
| Aortadissectie | Lage celopbrengst | Onvolledig herstel van de aorta of weefselschade tijdens dissectie | Zorg voor volledige isolatie van de aortawortel tot de iliacabifurcatie; hanteer het weefsel voorzichtig om beschadiging te voorkomen |
| Reiniging van de aorta | Fibroblastcontaminatie | Onvolledige verwijdering van het adventitiaal weefsel | Verwijder de adventitia zorgvuldig na de initiële digestie; dit is cruciaal voor de zuiverheid van de SMC's |
| Initiële digestie | Moeilijkheden bij het verwijderen van de adventitia | Onvoldoende enzymatische versoepeling | Zorg voor een juiste incubatie (8-10 min) voordat u overgaat tot mechanisch strippen |
| Enzymatische digestie | Lage celopbrengst | Onvolledige digestie van weefsel | Verleng de digestietijd enigszins of verhoog de frequentie van de mechanische dissociatie |
| Enzymatische digestie | Slechte celviabiliteit | Overmatige digestie of overmatige blootstelling aan enzymen | Verkort de verteringstijd en vermijd langdurige incubatie |
| Mechanische dissociatie | Gebrekkige celvrijzetting | Onjuist pipetteren | Voer elke 30-60 min voorzichtig herhaalde pipetteerstappen uit |
| Celhechting | Slechte hechting aan de plaat | Celbeschadiging of koud medium | Gebruik voorverwarmde media en minimaliseer stress door manipulatie |
| Vroege kweek | Geen celgroei | Lage levensvatbaarheid of contaminatie | Bevestig de digestiecondities en steriliteit; herhaal de isolatie indien nodig |
| Celmorfologie | Geen spoelvorm (ronde/platte cellen blijven aanwezig) | Contaminatie of fenotypische drift | Verifieer de verwijdering van de adventitia; voorkom overgroei en een te lange kweekduur |
| Celgroei | Trage proliferatie | Suboptimale serumconcentratie | Gebruik 20% FBS tijdens de vroege expansiefase |
| Confluentie | Over-confluente cellen zijn moeilijk te passageren | Vertraagde splitsing | Passageer de cellen bij een confluentie van 80-90% |
| Passageren | Onvoldoende loslating | Cellen zijn te confluent of er is onvoldoende trypsinisatie | Verhoog de blootstelling aan trypsine enigszins en ondersteun de loslating mechanisch |
| Langetermijnkweek | Verlies van SMC-fenotype | Hoog passagenummer of langdurige cultuur | Gebruik cellen tussen passage 3-7 |
| Reproduceerbaarheid | Variabiliteit tussen isolaties | Verschillen in techniek of biologische variabiliteit | Standaardiseer de enzymbereiding, timing en hantering over de experimenten heen |
Tabel 2: Gids voor het oplossen van problemen bij de isolatie en kweek van primaire murine aortale gladde spiercellen. Samenvatting van veelvoorkomende technische problemen die optreden tijdens de isolatie, digestie en kweek van primaire murine aortale gladde spiercellen, inclusief potentiële oorzaken en aanbevolen oplossingen om de reproduceerbaarheid te verbeteren.
Discussie
Dit protocol biedt een robuuste en reproduceerbare methode voor het isoleren en kweken van primaire muire aortaire gladde spiercellen (SMC's) voor in vitro studies. Naast het technische nut is deze aanpak zeer relevant voor het onderzoeken van mechanismen die ten grondslag liggen aan vasculaire remodellering en de ontwikkeling van aortaneurysma's. Gezien de gevestigde rol van het renine-angiotensine-systeem (RAS) en Ang II bij vasculaire ontsteking en aneurysmavorming15,16, biedt de isolatie van primaire aortaire SMC's een waardevolle aanpak om deze signaalpaden op cellulair niveau te onderzoeken.
Een doorslaggevende factor voor het succes is de grondige verwijdering van het adventitiaweefsel. De adventitia bevat fibroblasten en andere niet-SMC-populaties die in cultuur de SMC's kunnen overgroeien als ze niet adequaat worden verwijderd. De korte initiële enzymatische digestiestap vergemakkelijkt de mechanische scheiding van de adventitia van de mediale laag, waardoor een preciezere dissectie mogelijk is. Het onvoldoende uitvoeren van deze stap is een van de meest voorkomende oorzaken van contaminatie en variabiliteit in protocollen voor de isolatie van SMC's.
De omstandigheden voor de enzymatische digestie moeten ook zorgvuldig worden geoptimaliseerd. De combinatie van collagenase type II, elastase en een soja-trypsine-inhibitor maakt een efficiënte afbraak van componenten van de extracellulaire matrix mogelijk, terwijl de cellevensvatbaarheid behouden blijft. De digestie moet echter nauwgezet worden gemonitord. Onvoldoende digestie leidt tot incomplete weefseldissociatie en een lagere celopbrengst, terwijl overmatige digestie de cellen kan beschadigen, de aanhechting kan belemmeren en de levensvatbaarheid kan verminderen. Mechanische dissociatie door middel van voorzichtig, herhaald pipetteren is daarom een essentiële aanvullende stap, die de celvrijgave bevordert terwijl overmatige blootstelling aan enzymen wordt geminimaliseerd. Samen benadrukken deze stappen het belang van een balans tussen enzymatische en mechanische verwerking om zowel de celopbrengst als de levensvatbaarheid te optimaliseren. Het handhaven van consistente digestietijden, weefselbehandeling en mechanische dissociatie gedurende de gehele procedure is evenzeer belangrijk voor het verbeteren van de reproduceerbaarheid tussen isolaties.
Kweekcondities spelen een centrale rol bij het behoud van het fenotype en de functie van SMC. Media met een hoog serumgehalte (20% foetaal runderserum) ondersteunen de initiële aanhechting en expansie van primaire cellen na isolatie. Serum behandeld met houtskool/dextran werd gebruikt om de variabiliteit door hormonen en lipidcomponenten die aanwezig zijn in standaard serumpreparaten te verminderen. Echter, langdurige blootstelling aan een hoog serumgehalte of een verlengde kweekduur kan fenotypische drift bevorderen naar een synthetische of fibroblast-achtige staat. Om deze effecten te minimaliseren, wordt aanbevolen om cellen in vroege tot middelste passages (P3–P7) te gebruiken en overconfluente condities te vermijden, aangezien deze de morfologie kunnen veranderen en het proliferatieve vermogen kunnen verminderen.
De morfologie van geïsoleerde cellen vormt een belangrijke eerste indicator voor de kwaliteit van de cultuur. Gezonde SMC's vertonen een kenmerkende spoelvormige, langgerekte morfologie en richten zich in parallelle rijen bij een hogere confluentie. Afwijkingen van deze morfologie, waaronder afgeplatte of onregelmatig gevormde cellen, kunnen wijzen op contaminatie, suboptimale kweekcondities of fenotypische drift. Morfologische kenmerken die wijzen op een fenotypische overgang van een contractiele naar een synthetische staat zijn onder meer verhoogde celuitspreiding, verminderde spoelvormige morfologie, verlies van parallelle uitlijning en meer heterogene groeipatronen.
Hoewel morfologische beoordeling informatief is, is deze onvoldoende om het SMC-fenotype definitief vast te stellen en moet deze worden aangevuld met moleculaire validatie met behulp van markers zoals α-SMA en MYH11, afhankelijk van de toepassing. In de huidige studie bevestigde α-SMA-immunofluorescentie de identiteit van de geïsoleerde cellen en toonde een hoog aandeel α-SMA-positieve cellen aan in zowel THX- als ABD-culturen (Figuur 5). Een belangrijk voordeel van dit protocol is de mogelijkheid om SMC's te isoleren uit verschillende aortagebieden, waaronder THX- en ABD-segmenten. Deze gebieden vertonen intrinsieke biologische verschillen, waaronder variatie in de samenstelling van de extracellulaire matrix, embryologische oorsprong en vatbaarheid voor ziekten. Isolatie van gebiedsspecifieke SMC's maakt onderzoek naar ruimtelijke heterogeniteit in de vasculaire biologie mogelijk en kan inzicht verschaffen in gebiedsspecifieke kwetsbaarheid voor aneurismavorming16,17,18. Bestaande methoden voor de isolatie van murine aortale VSMC's maken gebruik van ofwel collageenase-digestie gedurende de nacht13 of 4–6 h enzymatische digestie, waarbij wordt gerapporteerd dat 5–6 h een beter herstel oplevert14, vergeleken met de 2–3 h digestie na een pre-digestie van 8–10 min die in het huidige protocol wordt gebruikt, met een totale verwerkingstijd van ongeveer 4 h van euthanasie tot het uitplaten van de cellen. Adhikari et al. rapporteerden 25–35 × 103 levende cellen/mL na 5 dagen cultuur en 97%–99% positiviteit voor sm22α en Acta2, terwijl het huidige protocol passage-3 celgetallen opleverde van 5.10 × 10⁵ ± 7.81 × 10⁴ cellen voor THX en 4.63 × 10⁵ ± 2.31 × 10⁴ cellen voor ABD, met een algehele α-SMA-positiviteit van 95,8%. Hubert et al. gebruikten digestie gedurende de nacht, maar rapporteerden geen kwantitatieve celopbrengst of zuiverheidspercentage13,14. In tegenstelling hiermee vereiste de explantaat-gebaseerde methode van McMurray et al. een gemiddelde lag-periode van ongeveer 7,6 dagen voordat SMC-uitgroei uit normale aortale explantaten plaatsvond, waarbij >90% van de explantaten tegen dag 10 uitgroei vertoonden en >95% tegen dag 12, terwijl de huidige enzymatische methode direct uitplaten van geïsoleerde cellen op de dag van isolatie mogelijk maakt18. Het huidige protocol combineert een korte pre-digestiestap die de verwijdering van de adventitia vergemakkelijkt met gestandaardiseerde digestie- en mechanische dissociatiecondities om een consistente weefselverwerking en celterugwinning te bevorderen. Samen met de gebiedsspecifieke isolatie van THX- en ABD-SMC's bieden de kortere verwerkingstijd en de kwantitatieve karakterisering van celterugwinning en α-SMA-positiviteit praktische voordelen voor reproduceerbare in vitro studies.
Deze methode is zeer geschikt voor mechanistische studies waarbij genetische en farmacologische manipulatie wordt toegepast. Primaire SMC-culturen kunnen worden gebruikt voor gene silencing-benaderingen, waaronder siRNA-gemedieerde knockdown, evenals voor overexpressiestudies en medicijnbehandelingen. Deze benaderingen maken directe analyse mogelijk van signaleringspaden die betrokken zijn bij het fenotypische switchen van SMC's, inflammatie en remodellering van de extracellulaire matrix, processen die centraal staan bij de ontwikkeling en progressie van aorta-aneurysma's1,5.
Het is belangrijk om de beperkingen van dit protocol te overwegen in de context van ziektemodellering. De gladde spiercellen in dit protocol worden geïsoleerd uit niet-zieke muis-aorta's en vertonen daarom inherent geen aneurysma-geassocieerde fenotypes. Daarom zijn aanvullende experimentele benaderingen vereist om ziekterelateerde processen, zoals inflammatoire activatie, remodeling van de extracellulaire matrix en fenotypische switching, na te bootsen; denk hierbij aan farmacologische stimulatie, genetische manipulatie of integratie met in vivo-modellen. Naast de hierboven beschreven overwegingen kent dit protocol enkele beperkingen. Variabiliteit in celopbrengst en groeikinetiek kan optreden tussen isolaties door biologische verschillen tussen dieren of kleine variaties in de techniek. Daarnaast kan isolatie op basis van enzymatische digestie de expressie van celoppervlakreceptoren of signaleringsroutes beïnvloeden, wat in overweging moet worden gebracht bij de interpretatie van downstream functionele studies. Primaire SMC's verliezen bovendien geleidelijk hun contractiele fenotype bij een toenemend passagenummer, wat de experimentele resultaten kan beïnvloeden. Zorgvuldige standaardisatie van de procedures en het gebruik van cellen met een laag passagenummer kunnen helpen deze beperkingen te beperken. Veelvoorkomende technische uitdagingen en aanbevolen oplossingen voor dit protocol zijn samengevat in Tabel 2.
Samenvattend biedt dit protocol een betrouwbaar en aanpasbaar kader voor de isolatie en cultuur van primaire murine aortaire SMC's. In combinatie met in vivo-modellen maakt deze aanpak een uitgebreid onderzoek mogelijk naar de cellulaire en moleculaire mechanismen die ten grond liggen aan vasculaire remodellering en de pathogenese van aortaneurysma's.
Openbaarmakingen
De auteurs verklaren dat er geen concurrerende belangen zijn. Grammarly is gebruikt voor taalbewerking en grammaticaal correctie; alle wetenschappelijke inhoud en interpretaties zijn opgesteld door de auteurs.
Dankbetuigingen
Financiële ondersteuning werd gedeeltelijk verstrekt door het University of Kentucky College of Medicine. De grafische samenvatting (Figuur 1) is gemaakt met BioRender.com onder een Academic Publication License, met publicatieovereenkomst nummer GI2A3W9TY8.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0.2 μm Nylon spuitfilters | VWR | 76439-080 | Steriele filtratie |
| 15 mL conische buizen | VWR | — | Voor aorta-overdracht na reiniging en voor celverzameling |
| 6-wells / 12-wells kweekplaten (onbehandeld) | Corning | — | Celkweek |
| 50 mL conische buizen | VWR | — | Celverzameling |
| 96-wells microplaat met optische bodem | Thermo Fisher Scientific | 165305 | Voor SMC-validatie |
| α-gladde spieractine antilichaam (monoklonaal) | Cell Signaling Technology | 19245S | Voor SMC-validatie; 1:1000 werkverdunning |
| Alexa Fluor 488 IgG secundair antilichaam (polyklonaal) | Invitrogen | A-11008 | Voor SMC-validatie; 1:2500 werkverdunning |
| Amfotericine B | Thermo Fisher Scientific | 15290018 | Antischimmelmiddel |
| Bovien serumalbumine | Sigma-Aldrich | A7906 | Voor SMC-validatie |
| CO2 incubator (37 °C) | Diverse | — | Celkweekcondities |
| Collagenase Type II | Worthington Biochemical | LS004174 | Voor enzymatische digestie; 260 U/mg gebruikt |
| Countess automatische celteller | Invitrogen | C10281 | Voor het tellen van cellen |
| Dissectiemicroscoop | Diverse | — | Reiniging van weefsel |
| DMEM/F12 medium | Thermo Fisher Scientific | 21041-025 | Basis kweekmedium |
| Elastase | Worthington Biochemical | LS002279 | Voor afbraak van de matrix; 4,17 U/mg proteïne gebruikt |
| Foetaal runderserum (behandeld met houtskool/dextran) | Cytiva (Hyclone) | SH30068.03 | Gebruikt op 20% voor kweek |
| HBSS met Ca2+ en Mg2+ | Thermo Fisher Scientific | 14025-092 | Gebruikt voor digestiebuffer |
| Hoechst 33342 oplossing | BD Pharmingen | 561908 | Voor SMC-validatie |
| Hete kraalsterilisator | Fine Science Tools | 18000-45 | Voor aorta-extractie |
| Ketamine | Dechra | — | Voor muisanesthesie |
| Penicilline/streptomycine | Thermo Fisher Scientific | 15140122 | Antibioticum |
| Fosfaatgebufferde zoutoplossing (PBS) | Thermo Fisher Scientific | 20012-027 | Wasbuffer |
| Natriumchloride | Fisher Scientific | BDH9286 | Voor SMC-validatie; 150 mM werkconcentratie (8,8 g voor 1 L) |
| Sojaboon trypsine-inhibitor | Worthington Biochemical | LS003570 | Voorkomt over-digestie |
| Tris-base | Fisher Scientific | BP152 | Voor SMC-validatie; 20 mM werkconcentratie (2,4 g voor 1 L) |
| Triton X-100 | Fisher Scientific | BP151 | Voor SMC-validatie; 0,1% werkconcentratie |
| Trypanblauw kleuring | Thermo Fisher Scientific | T10282 | Voor celtelling |
| Trypsine-EDTA (0,05%) | Thermo Fisher Scientific | 15400054 | Voor passageren |
| Tween 20 | Fisher Scientific | BP337 | Voor SMC-validatie; 0,1% werkconcentratie |
| Xylazine | Covetrus | 61035 | Voor muisanesthesie |
| Optionele materialen (indien gebruikt) | |||
| Kweekflessen (T25/T75) | Corning | — | Cel-expansie |
Referenties
- Ensor M, et al. Nicotine promotes Ang II-induced abdominal aortic aortopathies in female and male mice: role of sex hormones. Clin Sci (Lond). 2025;139(8):411-429.
- Ailawadi G, et al. Smooth muscle phenotypic modulation is an early event in aortic aneurysms. J Thorac Cardiovasc Surg. 2009;138(6):1392-1399.
- Frismantiene A, Philippova M, Erne P, Resink TJ. Smooth muscle cell-driven vascular diseases and molecular mechanisms of VSMC plasticity. Cell Signal. 2018;52:48-64.
- Alsiraj Y, et al. Female mice with an XY sex chromosome complement develop severe angiotensin II-induced abdominal aortic aneurysms. Circulation. 2017;135(4):379-391.
- Thatcher SE, et al. Exogenous 17-β estradiol administration blunts progression of established angiotensin II-induced abdominal aortic aneurysms in female ovariectomized mice. Biol Sex Differ. 2015;6:12.
- Daugherty A, Manning MW, Cassis LA. Angiotensin II promotes atherosclerotic lesions and aneurysms in apolipoprotein E-deficient mice. J Clin Invest. 2000;105(11):1605-1612.
- AlSiraj Y, et al. Monosomy X in female mice influences the regional formation and augments the severity of angiotensin II-induced aortopathies. Arterioscler Thromb Vasc Biol. 2021;41(1):269-283.
- Alsiraj Y, et al. Sex chromosome complement defines diffuse versus focal angiotensin II-induced aortic pathology. Arterioscler Thromb Vasc Biol. 2018;38(1):143-153.
- Alsiraj Y, et al. Therapeutic assessment of combination therapy with a neprilysin inhibitor and angiotensin type 1 receptor antagonist on angiotensin II-induced atherosclerosis, abdominal aortic aneurysms, and hypertension. J Pharmacol Exp Ther. 2021;377(3):326-335.
- AlSiraj Y, et al. Serotonin 3 receptor antagonism reduces angiotensin II-induced abdominal aortic aneurysms: contribution of periaortic fat-derived serotonin. J Pharmacol Exp Ther. 2025;392(2):100533.
- AlSiraj Y et al. Role of adipocyte angiotensinogen or angiotensin type 1A receptors in the development of diet-induced atherosclerosis or angiotensin II-induced abdominal aortic aneurysms. JVS Vasc Sci. 2025;7:100397.
- Alexander MR, Owens GK. Epigenetic control of smooth muscle cell differentiation and phenotypic switching in vascular development and disease. Annu Rev Physiol. 2012;74:13-40.
- Hubert MO, Rodriguez-Vita J, Wiedmann L, Fischer A. Isolation of murine primary aortic smooth muscle cells. Bio Protoc. 2021;11(3):e3907.
- Adhikari N, et al. Guidelines for the isolation and characterization of murine vascular smooth muscle cells. A report from the International Society of Cardiovascular Translational Research. J Cardiovasc Transl Res. 2015;8(3):158-163.
- AlSiraj Y, Woolley C, Thatcher SE, Cassis LA. Sex differences and the role of the renin-angiotensin system in atherosclerosis and abdominal aortic aneurysms. In: Sex Differences in Cardiovascular Physiology and Pathophysiology. Academic Press; 2019:167-184.
- Boese AC, et al. Sex differences in vascular physiology and pathophysiology: estrogen and androgen signaling in health and disease. Am J Physiol Heart Circ Physiol. 2017;313(3):H524-H545.
- Majesky MW. Developmental basis of vascular smooth muscle diversity. Arterioscler Thromb Vasc Biol. 2007;27(6):1248-1258.
- McMurray HF, Parrott DP, Bowyer DE. A standardised method of culturing aortic explants, suitable for the study of factors affecting the phenotypic modulation, migration and proliferation of aortic smooth muscle cells. Atherosclerosis. 1991;86(2-3):227-237.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar