Dit artikel presenteert een snelle, reproduceerbare workflow om slaapgebrek-geïnduceerde tekorten in het herkenningsgeheugen bij muizen te modelleren door een combinatie van sleep deprivation met milde hantering, novel object recognition-testen en hippocampus-biomarkeranalyse in dezelfde dieren over een pipeline van 10 dagen, met gestructureerde registratie van interventies en vooraf gedefinieerde kwaliteitscontrolecriteria.
Methodenartikel
Een snelle workflow voor het modelleren van door slaapgebrek geïnduceerde tekorten in het herkenningsgeheugen bij muizen met behulp van novel object recognition en hippocampale biomarkers
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Onvoldoende slaap draagt bij aan cognitieve achteruitgang en kan neurodegeneratieve processen versnellen. Dit artikel presenteert een snelle en reproduceerbare workflow voor het modelleren van slaapgebrek-geïnduceerde tekortkomingen in het herkenningsgeheugen bij muizen, waarbij gedragsresultaten worden gekoppeld aan moleculaire veranderingen in de hippocampus. Het protocol maakt gebruik van een paradigma van 5 u Oneslapgebrek door milde hantering, toegediend direct na een gestandaardiseerde familiarisatiesessie van 10 min voor nieuwe objectherkenning (NOR). Het herkenningsgeheugen wordt geëvalueerd met een NOR-test van 5 min na een nauwkeurig gedefinieerd retentie-interval van 5 u, gevolgd door onmiddellijke afname van de hippocampus van dezelfde dieren voor kwantificering van pro-inflammatoire cytokinen, waaronder interleukine-1 bèta (IL-1β), interleukine-6 (IL-6) en tumornecrosefactor-alfa (TNF-α), en markers voor oxidatieve stress, waaronder superoxide-dismutase (SOD), glutathionperoxidase (GPx) en malondialdehyde (MDA). De belangrijkste methodologische vooruitgang is niet de individuele gedrags- of biochemische technieken, die reeds goed gevestigd zijn, maar hun operationele standaardisatie als één gekoppelde workflow. Het protocol vereist een gestructureerd, kwantificeerbaar logboek van de interventies door milde hantering, koppelt training en slaapgebrek aan een vast circadiaan tijdstip, behoudt koppelingen op dierniveau tussen NOR-registraties en weefselmonsters, en specificeert vooraf de kwaliteitscontrole- en analysecriteria. De procedure is ontworpen om fysieke beperking en geforceerde lichaamsbeweging te minimaliseren, kan binnen een kort experimenteel tijdsbestek worden voltooid en wordt voorgesteld als een referentieworkflow die individuele laboratoria kunnen gebruiken om hun eigen implementatie van slaapgebrek door milde hantering te benchmarken, afhankelijk van onafhankelijke replicatie.
Inleiding
Slaap is een fundamenteel fysiologisch proces dat essentieel is voor de hersenfunctie, het leren en de consolidatie van het geheugen1. Onvoldoende slaap wordt geassocieerd met cognitieve disfunctie, stemmingsstoornissen en de progressie van neurodegeneratieve ziekten2. Experimentele slaapdeprivatie (SD) bij knaagdieren wordt veelvuldig gebruikt om de neurobiologische gevolgen van acuut slaapverlies te onderzoeken. De hippocampus, een hersengebied dat centraal staat bij het declaratieve en spatiale geheugen, is bijzonder kwetsbaar voor slaapdeprivatie3.
Er zijn verschillende procedures beschikbaar om slaapgebrek bij knaagdieren op te wekken. De gemodificeerde methode met meerdere platforms kan de rapid eye movement-slaap effectief verminderen, maar kan aanzienlijke stress en fysieke uitputting veroorzaken4. In contrast hiermee houdt gentle handling (GH) de waakzaamheid in stand door middel van milde sensorische stimulatie, zoals het tikken tegen de kooi, het verstoren van de bodembedekking of het aanbieden van nieuw nestmateriaal zodra er tekenen van slaap optreden. Een korte GH-periode die direct na het leren wordt toegepast, kan de hippocampus-afhankelijke geheugenconsolidatie verstoren, terwijl veel van de storende variabelen die geassocieerd worden met langdurige deprivatieparadigma's worden vermeden5. Omdat interventies in dit protocol worden geactiveerd door houding en gedragskenmerken van waakzaamheid in plaats van door EEG-bevestigde REM-detectie, vormt GH zoals hier geïmplementeerd een gevestigde methode voor totale slaapdeprivatie in plaats van een REM-specifieke techniek, en wordt dit in deze vorm al enkele decennia gebruikt6.
De test voor herkenning van nieuwe objecten (novel object recognition, NOR) is een veelgebruikte assay voor het herkenningsgeheugen. Deze is gebaseerd op de natuurlijke neiging van knaagdieren om een nieuw object uitgebreider te verkennen dan een bekend object, zonder dat daar beloning, bestraffing of uitgebreide training voor nodig is7,8. Er is aangetoond dat acute slaapdeprivatie (SD) de discriminatie van nieuwe objecten verslechtert, wat een efficiënte gedragsmatige indicatie geeft van een verstoorde geheugenconsolidatie9. Op moleculair niveau kan slaapgebrek leiden tot neuro-inflammatie in de hippocampus en oxidatieve stress, waaronder verhoogde concentraties pro-inflammatoire cytokinen en lipideperoxidatieproducten, samen met een verminderde antioxidantcapaciteit10,11.
De uitdaging bij de toepassing van dit model is niet de beschikbaarheid van de individuele elementen, maar het gebrek aan operationele consistentie tussen studies. Voorzichtige hantering wordt vaak gerapporteerd zonder een gestructureerde registratie van de intensiteit van de interventie; gedragsmatige en moleculaire eindpunten worden frequent verzameld in afzonderlijke cohorten; en de kwaliteitscontrolecriteria voor exploratiegedrag en de planning van de steekproefgrootte zijn niet altijd expliciet. Het algemene doel van het huidige artikel is om een gestandaardiseerde workflow te bieden voor het modelleren van slaaptekort-geïnduceerde tekorten in het herkenningsgeheugen, waarbij gedragsuitkomsten worden gekoppeld aan moleculaire hippocampusmetingen in dezelfde dieren. De methode pakt deze reproduceerbaarheidslacunes aan door een GH-venster van 5 h na de training, een logboek voor de interventie-intensiteit, gedrags- en weefselverzameling in hetzelfde cohort en vooraf gedefinieerde analytische criteria te combineren in één pipeline van 10 dagen (Figuur 1). Het gebrek aan standaardisatie bij de implementatie van GH is eerder opgemerkt in de methodologische literatuur over slaaponderzoek6.
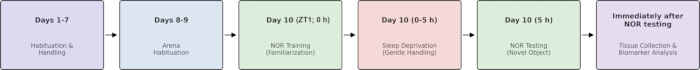
Figuur 1. Schematische weergave van de experimentele workflow. Het protocol beslaat 10 dagen, inclusief hantering en habituatie, gevolgd door een kritieke testdag met een NOR-familiarisatiefase van 10 min, 5 h GH-slaapdeprivatie, een NOR-test van 5 min en onmiddellijke hippocampusweefselcollectie van dezelfde dieren voor biomarkeranalyse. Klik hier om een grotere versie van deze figuur te bekijken.
Protocol
Alle dierprocedures zijn beoordeeld en goedgekeurd door de commissie voor dierenwelzijn en ethiek van AILIMO (Zhejiang AILIMO Biotechnology Co., Ltd.) op basis van een aanvraag van het Nanjing Drum Tower Hospital (hoofdonderzoeker: Yuan Liu), goedkeuringsnummer AP CODE: ALM202605070, goedgekeurd op 7 mei 2026 (geldig voor 4 jaar), in overeenstemming met de geldende institutionele en nationale regelgeving. Gebruik volwassen mannelijke C57BL/6J-muizen (8–12 weken oud) voor het hieronder beschreven protocol.
1. Voorbereiding en habituatie van de dieren
- Huismuizen onder standaard laboratoriumomstandigheden bij 22°C ± 1°C en 50%–60% vochtigheid met een cyclus van 12 u licht/12 u donker (lichten aan om 07:00, gedefinieerd als ZT0). Zorg voor ad libitum toegang tot standaard knaagdiervoer en water.
- Hanteer elke muis dagelijks gedurende 3–5 min gedurende ten minste 7 opeenvolgende dagen vóór de test.
OPMERKING: Deze procedure minimaliseert door hantering veroorzaakte stress die het exploratiegedrag zou kunnen beïnvloeden. - Bereid een vierkante, ondoorzichtige NOR-arena voor met afmetingen van 40 cm × 40 cm × 40 cm en niet-reflecterende wanden. Gebruik een kleur voor de arena die contrasteert met de vachtkleur van de dieren.
- Selecteer NOR-objecten die zwaar genoeg zijn om verschuiving te voorkomen en gemaakt zijn van niet-poreus materiaal. Gebruik objecten die onderscheidbaar zijn in vorm en textuur, maar vergelijkbaar blijven in totale grootte.
OPMERKING: Figuur 2 toont de configuratie voor training en test. - Breng de muizen op Dag 8 en 9 één uur vóór de habituatie over naar de testruimte. Plaats elke muis gedurende 10 min in de lege arena en breng deze vervolgens terug naar de thuiskooi.
- Veeg de arena en de objecten af met 70% ethanol tussen de dieren door. Laat de ethanol ongeveer 3–5 min aan de lucht drogen onder normale laboratoriumventilatie voordat het volgende dier wordt geïntroduceerd.
WAARSCHUWING: Ethanol is zeer brandbaar. Zorg voor adequate ventilatie en houd het uit de buurt van ontstekingsbronnen.
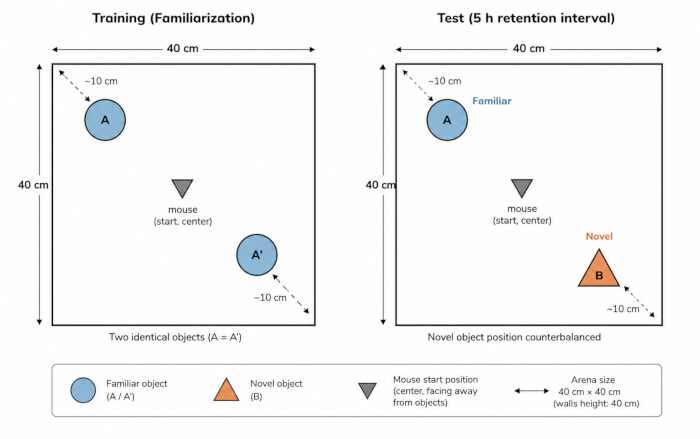
Figuur 2. Schema van de opstelling voor objectherkenning en het experimentele ontwerp. Plaats tijdens de gewenningsfase twee identieke objecten (A en A′) in tegenovergestelde hoeken van de arena. Vervang tijdens de testfase, na een retentie-interval van 5 h, één bekend object door een nieuw object (B). Om ruimtelijke bias te minimaliseren, moet de positie van het nieuwe object worden gebalanceerd tussen de linker- en rechterpositie over de dieren heen, waarbij ongeveer de helft van de dieren in elke groep het nieuwe object in elke positie krijgt. Klik hier om een grotere versie van deze figuur te bekijken.
2. NOR-training (gewenning)
- Begin op dag 10 de NOR-training op ZT1 (08:00 volgens het vermelde lichtschema). Houd deze starttijd voor alle cohorten aan om circadiane variatie te minimaliseren.
- Verplaats de muizen 1 u voor het begin van de trainingssessie naar de testruimte. Plaats twee identieke objecten (A en A′) in tegenovergestelde hoeken van de arena, ongeveer 10 cm van de wanden.
- Bevestig de objecten indien nodig aan de vloer.
- Plaats de muis in het midden van de arena, met de neus van de objecten afgewend. Laat de muis 10 min vrij verkennen.
- Registreer het gedrag met een overhead video-trackingsysteem. Definieer actieve exploratie als het richten van de neus naar een object op een afstand van ≤2 cm, het snuffelen aan het object of het aanraken ervan met de neus.
OPMERKING: Tel het zitten op of klimmen op een object zonder actief gesnuif niet als objectexploratie. - Registreer en score het NOR-gedrag met EthoVision XT versie 17.5 en een Basler acA1300-60gm overheadcamera. Configureer de trackingsoftware met een neuspunt-detectiezone van ≤2 cm vanaf elk object om actieve exploratie te scoren, in overeenstemming met de criteria gedefinieerd in stap 2.5.
- Verwijder de muis direct uit de arena aan het einde van de 10 min durende familiarisatiesessie.
- Maak de arena en de objecten grondig schoon met 70% ethanol voordat het volgende dier wordt geplaatst.
3. Slaapdeprivatie door zachte hantering
- Ken vóór de trainingssessie op dag 10 aan elk dier een unieke identificatiecode toe. Behoud deze identificatiecode gedurende de gedragsregistratie en de weefselafname.
- Wijs de dieren toe aan de SD- en NSD-groepen in een verhouding van 1:1 met behulp van door de computer gegenereerde willekeurige getallen via de RAND-functie van Excel.
- Keer na de NOR-training de NSD-muizen onmiddellijk terug naar hun thuiskooien en laat ze gedurende 5 u ongehinderd. Houd de SD- en NSD-dieren onder dezelfde omgevingscondities en binnen hetzelfde circadiane tijdsvenster.
- Start direct na de NOR-training de GH-slaapdeprivatie voor de SD-muizen. Houd ze gedurende 5 opeenvolgende uren wakker in de thuiskooi.
- Monitor de dieren continu. Grijp in wanneer een muis slaapgerelateerde houdingen aanneemt, zoals opkrullen, het sluiten van de ogen of aanhoudende bewegingloosheid.
- Pas de stimulatie progressief toe, beginnend met zacht tikken op de kooi. Indien nodig, verstoor lichtjes de bodembedekking, introduceer een schoon nieuw object zoals een papieren buisje, of raak het dier voorzichtig aan met een zachte borstel.
- Vermijd fysieke beperking, geforceerde locomotie en aversieve of pijnlijke stimulatie.
- Vul het interventielogboek in Tabel 1 in voor elke kooi gedurende de 5 u durende GH-periode. Noteer het geschatte aantal interventies per uur, het dominante type interventie en eventuele protocolafwijkingen of zorgen over het welzijn.
- Gebruik hetzelfde sjabloon voor het interventielogboek over alle cohorten heen.
WAARSCHUWING: Gebruik geen fysieke beperking, geforceerde lichaamsbeweging of pijnlijke stimuli, aangezien deze onafhankelijk van elkaar invloed kunnen hebben op het geheugen, stress en inflammatoire resultaten.
| Kooi/cohort-ID | H1 | H2 | H3 | H4 | H5 | Dominante interventietype(s) | Afwijking of welzijnsobservatie |
| Record-ID | Registreer het aantal H1 | Noteer het H2-aantal | Registreer het H3-aantal | Noteer het H4-aantal | Registreer H5-aantal | Tikken / nestmateriaal / nieuw object / zachte borstel | Noteer indien aanwezig |
Tabel 1: Sjabloon voor het logboek van zachte-behandelinginterventies. Noteer de kooi- of cohort-ID, het aantal zachte-behandelinginterventies tijdens elk uur van de 5 uren durende slaapdeprivatieperiode (H1–H5), het dominante type interventie(s) en eventuele protocolafwijkingen of welzijnsobservaties.
4. NOR-testfase
- Begin precies 5 u na voltooiing van de NOR-training met de NOR-testfase om een vast retentie-interval van 5 u te handhaven.
- Plaats één bekend object (A) en één nieuw object (B) in de arena.
- Balanceren Sie de positie van het nieuwe object over de dieren door de plaatsing af te wisselen tussen de linker- en rechterpositie, zodat ongeveer de helft van de dieren in elke groep het nieuwe object links ontvangt en de helft rechts.
- Plaats de muis in het midden van de arena. Laat de muis 5 min vrij verkennen.
- Registreer de sessie met hetzelfde video-trackingsysteem vanuit vogelperspectief als gebruikt bij de familiarisatie. Pas de definitie van exploratie toe zoals gespecificeerd in stap 2.5.
- Reinig de arena en de objecten tussen de dieren door met 70% ethanol.
5. Weefselverzameling en dissectie van de hippocampus binnen dezelfde cohort
- Identificeer direct na de NOR-test hetzelfde gedragskundig geteste dier voor weefselverzameling.
- Euthanaseer het dier door decapitaties zonder anesthesie, in overeenstemming met het goedgekeurde dierenprotocol, om potentiële storende effecten van anesthetica op inflammatoire en fosforyleringsafhankelijke biomarkers te vermijden. Verzamel het hersenweefsel onmiddellijk na euthanasie.
- Houd de unieke ID voor gedragsregistratie van het dier bij op alle monsterbuizen en in de verslagen om ervoor te zorgen dat elk moleculair monster direct gekoppeld blijft aan de NOR-uitkomst van dat dier.
- Extraheer de hersenen snel en plaats deze op een steriel, ijskoud dissectieoppervlak.
- Scheid de hemisferen met een midsagittale snede. Disseceer de hippocampus uit elke hemisfeer met gekoelde microspatels.
- Bevries de gedissecteerde hippocampi direct in vloeibare stikstof. Bewaar de monsters bij −80°C tot aan de analyse.
WAARSCHUWING: Vloeibare stikstof kan ernstige koudeletsels veroorzaken. Draag geschikte cryogene persoonlijke beschermingsmiddelen.
6. Kwantificering van hippocampale biomarkers
- Vul ijskoude RIPA-lysebuffer aan met een gecombineerde protease- en fosfataseremmercocktail bij een werkconcentratie van 1× (10 µL per mL lysebuffer vanuit een 100× stockoplossing).
- Homogeniseer hippocampaal weefsel bij een weefsel-bufferverhouding van 1:10 (w/v) in de aangevulde ijskoude RIPA-lysebuffer (10 µL lysebuffer per mg weefsel). Gebruik voor een typische hippocampale weefselmassa van ongeveer 25–30 mg per hemisfeer ongeveer 250–300 µL lysebuffer per hemisfeer, of ongeveer 500–600 µL voor ongeveer 50–60 mg bilateraal hippocampaal weefsel.
- Centrifugeer het RIPA-homogenaat 15 min bij 14.000 × g en 4°C en verzamel het supernatant. Gebruik het supernatant voor de bepaling van de totale eiwitconcentratie en de drie cytokine-ELISA's.
OPMERKING: Gebruik voor de SOD-, GPx- en MDA-assays de kitspecifieke homogenisatiebuffers conform de aanbevelingen van de fabrikant om de enzymatische activiteit te behouden. - Bereid een apart 10% (w/v) hippocampaal homogenaat voor SOD-, GPx- en MDA-metingen bij een weefsel-bufferverhouding van 1:9, waarbij de overeenkomstige kitspecifieke homogenisatiebuffer wordt gebruikt in plaats van RIPA-lysebuffer.
- Bepaal de totale eiwitconcentratie met behulp van een BCA-eiwitassay.
- Kwantificeer IL-1β, IL-6, TNF-α, SOD, GPx en MDA met behulp van de doelspecifieke ELISA- of biochemische assaykits die vermeld staan in de Tabel met Materialen. Volg voor elke assay de instructies van de fabrikant.
- Bereid de standaarden voor in de overeenkomstige assaybuffer. Verdun monsters zodanig dat de optische dichtheidswaarden binnen het lineaire deel van de standaardcurve vallen.
- Verdun hippocampale monsters voor de cytokine-ELISA's ongeveer 1:5 met het overeenkomstige assayverdunningsmiddel. Pas de verdunning indien nodig aan binnen een bereik van 1:2–1:10 om optische dichtheidswaarden binnen het lineaire deel van de standaardcurve te verkrijgen.
- Gebruik de supernatanten van de 10% (w/v) hippocampale homogenaten uit stap 6.4 direct voor de SOD-, GPx- en MDA-assays. Pas het verdunningsschema voor cytokine-ELISA's uit stap 6.8 niet toe op deze drie assays.
- Voeg voor de IL-1β-, IL-6- en TNF-α-ELISA's 100 µL standaard of adequaat verdund hippocampaal monster in dubbeltoevoeging per well toe en incubeer 90 min bij 37°C. Voeg 100 µL gebiotineerde detectieantilichamen toe en incubeer 60 min bij 37°C.
- Voeg 100 µL HRP-conjugaat toe aan elke cytokine-ELISA-well en incubeer 30 min bij 37°C. Ontwikkel met TMB-substraat gedurende ongeveer 15 min bij 37°C in het donker.
- Meng voor de SOD-assay 20 µL supernatant van hippocampaal homogenaat met 20 µL enzymwerkoplossing en 200 µL substraatoplossing. Incubeer 20 min bij 37°C en meet de absorbentie bij 450 nm.
- Combineer voor de GPx-assay 200 µL supernatant van hippocampaal homogenaat met het GSH-bevattende reactiemengsel en incubeer 5 min bij 37°C. Beëindig de reactie en centrifugeer het mengsel 10 min bij 3500 × g en 4°C. Laat het supernatant ongeveer 15 min kleuren en meet de absorbentie bij 412 nm met behulp van 200 µL van het reactiesupernatant.
- Meng voor de MDA-assay 100 µL supernatant van hippocampaal homogenaat met 1,0 mL MDA-werkreagens en incubeer 40 min in een waterbad van 95°C. Koel het mengsel af en centrifugeer het. Breng ongeveer 250 µL van het supernatant over naar een microplate en meet de absorbentie bij 532 nm.
- Lees voor de cytokine-ELISA's de absorbentie af bij de door de kit gespecificeerde golflengte, doorgaans 450 nm, met correctie voor de referentiegolflengte indien beschikbaar.
- Genereer een standaardcurve met behulp van een geschikt model, zoals een vierparameter logistische regressie. Normaliseer elke biomarkermeting naar het totale eiwitgehalte.
- Rapporteer cytokineconcentraties als pg/mg eiwit, antioxidant-enzymactiviteiten als U/mg eiwit en MDA als nmol/mg eiwit, indien compatibel met de gekozen kit.
7. Data-analyse en kwaliteitscontrole
- Extraheer de exploratietijd gewijd aan het bekende object (Tfamiliar) en het nieuwe object (Tnovel) tijdens de NOR-testfase.
- Bereken de discriminatie-index (DI) als volgt:
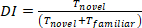 .
OPMERKING: Een DI boven de 0,5 duidt op een voorkeur voor het nieuwe object. - Sluit een dier uit van de NOR-analyse wanneer de totale objectexploratietijd (Tnovel + Tfamiliar) minder is dan 10 s. Pas dit criterium toe vóór de analyse op groepsniveau en rapporteer alle uitsluitingen.
- Beoordeel de normaliteit voor elke groep met de Shapiro–Wilk-test en de homogeniteit van de variantie met de Levene-test. Evalueer voor elke groep de DI ten opzichte van het kansniveau van 0,5 met een tweezijdige one-sample t-test; indien aan de normaliteitsveronderstelling niet wordt voldaan, gebruik dan in plaats daarvan een one-sample Wilcoxon signed-rank test tegenover 0,5.
- Stel alpha in op 0,05 voor alle statistische tests, tenzij anders gespecificeerd.
- Vergelijk de DI tussen onafhankelijke NSD- en SD-groepen met een tweezijdige unpaired t-test wanneer aan de veronderstellingen van normaliteit en variantie-homogeniteit is voldaan. Gebruik anders een Mann–Whitney U-test.
- Analyseer de exploratietijd van het bekende versus het nieuwe object met een two-way repeated-measures analysis of variance met Groep en Objecttype als factoren. Voer Sidak-gecorrigeerde pairwise post hoc vergelijkingen uit en rapporteer 95% betrouwbaarheidsintervallen naast alle schattingen van de groepsvergelijkingen.
- Vergelijk elke hippocampale biomarker tussen onafhankelijke NSD- en SD-groepen met een tweezijdige unpaired t-test wanneer aan de veronderstellingen van normaliteit en variantie-homogeniteit is voldaan. Gebruik anders een Mann–Whitney U-test.
- Bij het evalueren van meerdere biomarkers uit dezelfde cohort, controleer de false discovery rate over het biomarkerpaneel met de Benjamini–Hochberg-procedure. Rapporteer zowel de nominale als de FDR-gecorrigeerde p-waarden.
- Voer de a priori poweranalyse uit met G*Power versie 3.1 voor een tweezijdige vergelijking van onafhankelijke steekproeven, met de NOR-discriminatie-index als primaire uitkomstmaat. Baseer het verwachte effect op eerder gepubliceerde studies die een robuuste beperking van de voorkeur voor nieuwe objecten aantonen na slaapdeprivatie na het leren.
- Voer de a priori poweranalyse uit met een gestandaardiseerde effectgrootte van Cohen’s d = 1,35, een tweezijdige alpha van 0,05, 80% power en een allocatieratio van 1:1. Deze parameters leveren een berekende minimale steekproefomvang op van 10 dieren per groep.
OPMERKING: De effectgrootte werd geschat op basis van eerder gepubliceerde data over objectherkenning9. Palchykova et al. rapporteerden een significant groepseffect op de duur van de exploratie van het nieuwe object tijdens de testfase (F(1,16) = 8,26, p < 0,007) voor muizen die onmiddellijk na de training slaapdeprivatie ondergingen versus tijd-gecontroleerde controles (n = 9 per groep), wat overeenkomt met Cohen’s d ≈ 1,36. Daarom werd een gestandaardiseerde effectgrootte van d = 1,35 gehanteerd voor de a priori poweranalyse. - Verhoog de geplande steekproefomvang met 20% naar 12 dieren per groep (24 dieren in totaal) om ruimte te laten voor vooraf gespecificeerde gedragsmatige of technische uitsluitingen. Specificeer vooraf een totale objectexploratie <10 s tijdens de NOR-test, uitsluitingen gerelateerd aan dierenwelzijn, onbruikbare video-opnamen en technisch falen van weefsel-/monsteranalyses als uitsluitingscriteria.
- Sluit dieren niet uit op basis van de richting of grootte van het waargenomen behandelingseffect.
- Voer de statistische analyses uit met Python versie 3.12, SciPy versie 1.17 voor hypothese-testen en effectgrootte-berekeningen, en statsmodels versie 0.14 voor de Benjamini–Hochberg false discovery rate correctie.
- Bij het gebruik van dit protocol voor het genereren van een formele dataset, rapporteer de effectgroottes (bijv. Cohen's d voor groepsvergelijkingen) naast de p-waarden voor alle statistische tests gespecificeerd in stappen 7.4–7.9.
Resultaten
Een succesvolle implementatie van dit protocol zou moeten resulteren in een samenhangend gedragsmatig-moleculair uitkomstpatroon, zonder dat interpretatie van een enkele meetwaarde in isolatie vereist is. De volledige experimentele sequentie is geïllustreerd in Figuur 1, en de NOR-apparatuur en het experimentele ontwerp worden getoond in Figuur 2. In de NSD-groep zouden muizen een duidelijke voorkeur voor het nieuwe object moeten vertonen, weerspiegeld door een DI boven het kansniveau van 0,5. Muizen die werden blootgesteld aan het GH-protocol 5 u na de training, zouden een verminderde voorkeur voor het nieuwe object en een lagere DI moeten vertonen dan de NSD-controles. De totale objectexploratie zou vergelijkbaar moeten blijven tussen de groepen; een globale afname van de exploratie zou wijzen op motorische, angstgerelateerde of procedurele confoundingfactoren in plaats van een selectief tekort in het herkenningsgeheugen. In de huidige cohort (NSD, n = 12; SD, n = 12, waarvan één dier werd uitgesloten op basis van de vooraf vastgestelde drempelwaarde voor totale exploratie in stap 7.3, waardoor n = 11 overbleef voor de NOR-analyse; deze uitsluiting werd consistent toegepast op zowel de analyses van de discriminatie-index als de totale exploratietijd die hieronder worden gerapporteerd), vertoonden NSD-muizen een gemiddelde DI van 0,70 ± 0,05 (gemiddelde ± SD), significant boven het kansniveau van 0,5 (one-sample t-test, t(11) = 15,21, p < 0,0001), terwijl SD-muizen een gemiddelde DI van 0,51 ± 0,05 vertoonden, wat niet significant verschilde van het kansniveau (t(10) = 0,49, p = 0,638). De DI verschilde significant tussen de groepen (unpaired t-test, t(21) = 9,28, p < 0,0001; Cohen's d = 3,87; gemiddeld verschil = 0,19, 95% CI [0,15, 0,23]) (Figuur 3A). De totale exploratietijd verschilde niet significant tussen de groepen (NSD: 33,5 ± 8,7 s; SD: 29,9 ± 6,2 s; t(21) = 1,13, p = 0,272) (Figuur 3B), wat consistent is met een selectief effect op het herkenningsgeheugen in plaats van een gegeneraliseerde afname van het exploratiegedrag.
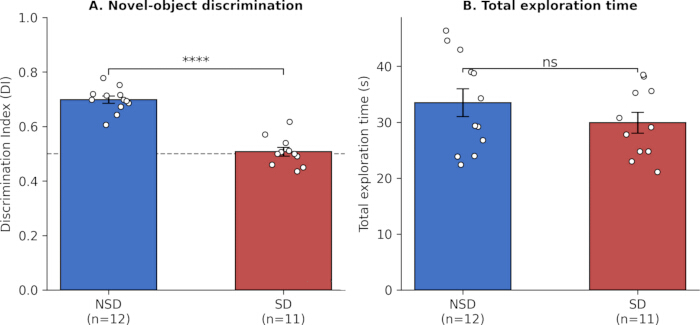
Figuur 3. Prestaties bij de novel object recognition test. (A) Discriminatie-index (DI) voor de NSD (n = 12) en SD (n = 11; één dier werd uitgesloten op basis van de vooraf vastgestelde drempelwaarde voor de totale exploratietijd) groepen. De stippellijn geeft het kansniveau van 0,5 aan. (B) Totale objectexploratietijd tijdens de testfase voor de NSD (n = 12) en SD (n = 11; dezelfde uitsluiting als in paneel A) groepen. Staven tonen het gemiddelde ± SEM; open cirkels tonen individuele dieren. ****p < 0,0001; ns, niet significant (tweezijdige ongepaarde t-test). Klik hier om een grotere versie van deze figuur te bekijken.
Het interventielogboek (Tabel 1) moet aantonen dat de GH werd gehandhaafd met milde, escalerende sensorische interventies in plaats van fixatie of geforceerde locomotie. Grote verschillen in het aantal interventies per uur tussen cohorten dienen aanleiding te geven tot een beoordeling van de kooiomstandigheden, de consistentie van de waarnemer en de hanteerpraktijken voordat gedragsverschillen worden geïnterpreteerd. Over de 12 cohorten die in deze studie zijn vastgelegd, varieerde het aantal interventies per uur tijdens het 5 uurs GH-venster van 1 tot 6 per uur, waarbij het hoofdzakelijk ging om het tikken tegen de kooi en het verstoren van de bodembedekking, terwijl interventies met een zachte borstel en nieuwe objecten minder vaak werden gebruikt; geen enkele kooi vereiste fysieke fixatie of geforceerde locomotie, en er werden geen afwijkingen in het welzijn waargenomen.
Biochemische metingen verzameld van dezelfde dieren moeten de moleculaire context voor het gedragsfenotype bieden. Van een succesvol SD-model wordt verwacht dat het een gecoördineerd patroon vertoont van een hogere last aan pro-inflammatoire cytokinen in de hippocampus, een verminderde antioxidant-enzymactiviteit en verhoogde markers voor lipidenperoxidatie in vergelijking met gematchte NSD-controles. Door elk weefselmonster te koppelen aan het corresponderende NOR-record is beoordeling op dierniveau van de concordantie tussen gedrag en moleculen mogelijk, terwijl batchvariatie door gescheiden gedragsmatige en biochemische cohorten wordt vermeden. In het huidige cohort (NSD, n = 12; SD, n = 12) verschilden alle zes de hippocampale biomarkers significant tussen de groepen in de verwachte richting, en alle bleven significant na Benjamini–Hochberg FDR-correctie over het panel van zes markers: IL-1β (NSD 43,4 ± 7,5 vs. SD 58,6 ± 5,3 pg/mg proteïne; t(22) = −5,73, nominaal p < 0,0001, FDR-gecorrigeerd p < 0,0001, d = −2,34), IL-6 (57,8 ± 8,1 vs. 71,8 ± 7,4 pg/mg; t(22) = −4,42, nominaal p = 0,0002, FDR-gecorrigeerd p = 0,0002, d = −1,81), TNF-α (40,5 ± 7,8 vs. 55,1 ± 7,8 pg/mg; t(22) = −4,60, nominaal p = 0,0001, FDR-gecorrigeerd p = 0,0002, d = −1,88), SOD (18,0 ± 2,0 vs. 14,0 ± 1,8 U/mg; t(22) = 5,16, nominaal p < 0,0001, FDR-gecorrigeerd p < 0,0001, d = 2,11), GPx (13,2 ± 0,9 vs. 10,8 ± 1,4 U/mg; t(22) = 4,92, nominaal p < 0,0001, FDR-gecorrigeerd p < 0,0001, d = 2,01), en MDA (3,5 ± 0,3 vs. 4,9 ± 0,8 nmol/mg; t(22) = −5,59, nominaal p < 0,0001, FDR-gecorrigeerd p < 0,0001, d = −2,28). Deze gegevens worden getoond in Figuur 4. De individuele datapunten getoond in Figuur 3 en Figuur 4 zijn de werkelijke experimentele metingen verkregen in dit cohort, en alle gerapporteerde gemiddelden, effectgroottes, p-waarden en betrouwbaarheidsintervallen zijn direct berekend uit deze onderliggende gegevens.
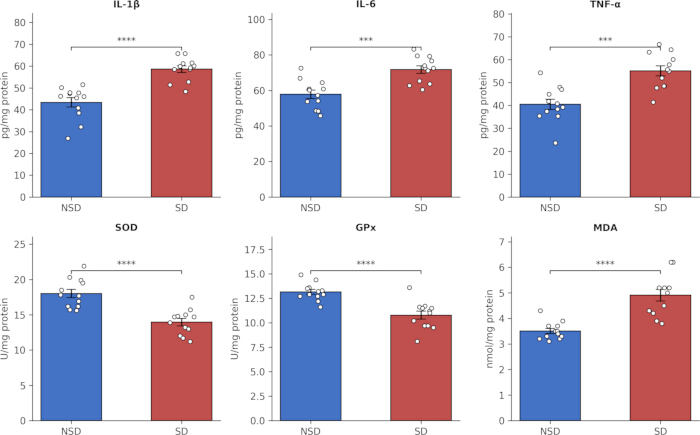
Figuur 4. Hippocampale biomarkers in NSD- versus SD-muizen. Hippocampale spiegels van IL-1β, IL-6 en TNF-α (pro-inflammatoire cytokinen), SOD en GPx (antioxidatieve enzymen) en MDA (marker voor lipideperoxidatie) in NSD- (n = 12) en SD-muizen (n = 12). De balken tonen het gemiddelde ± SEM; open cirkels tonen individuele dieren. Significantiemarkeringen weerspiegelen Benjamini–Hochberg FDR-gecorrigeerde p-waarden over het panel van zes markers. ***p < 0,001 en ****p < 0,0001 na FDR-correctie (tweezijdige ongepaarde t-toetsen). Klik hier om een grotere versie van deze figuur te bekijken.
Indien NSD-muizen geen voorkeur voor een nieuw object vertonen, indien de totale exploratie onder de vooraf gedefinieerde drempelwaarde zakt, of indien de variantie van biomarkers onverwacht groot is, dient men de habituatie, objectselectie, consistentie van de interventie, monsteridentificatie en de timing van de weefselverwerking te controleren voordat de cohort wordt herhaald, zoals samengevat in Tabel 2. Deze uitkomsten vertegenwoordigen suboptimale experimentele resultaten die probleemoplossing vereisen vóór de interpretatie. In de huidige cohort werd één SD-dier (M19) uitgesloten van de NOR-analyse op basis van de vooraf gespecificeerde drempelwaarde voor totale exploratie (8,7 s; Stap 7.3), wat het type suboptimale uitkomst illustreert dat door dit criterium wordt aangepakt; geen enkel NSD-dier vertoonde geen voorkeur voor een nieuw object, en geen enkele cohort vertoonde een onverwacht grote biomarker-variantie die herhaling van de cohort in deze dataset vereiste.
| Probleem | Mogelijke oorzaak | Oplossing |
| Lage algemene exploratie in NOR | Onvoldoende habituatie, hoge angst of overmatige omgevingsverstoring | Verleng de dagelijkse hantering; bevestig dat de testruimte stil en gedimd verlicht is; verifieer de habituatie aan de arena vóór de training. |
| Geen voorkeur voor nieuwe objecten bij NSD-controles | Objecten verschillen in aangeboren voorkeur of zijn onvoldoende onderscheidbaar | Screen vooraf objecten bij naïeve dieren; gebruik objecten met duidelijk verschillende texturen/vormen, maar met een gelijke grootte en toegankelijkheid. |
| Grote variatie in het aantal GH-interventies | Inconsistente drempelwaarden van de waarnemer of kookomstandigheden | Train waarnemers met gebruik van dezelfde criteria voor waakzaamheid; gebruik hetzelfde interventielogboek; standaardiseer de bedding, cage enrichment en de omgevingscondities. |
| Hoge variabiliteit in biomarkermetingen | Vertraagde dissectie, inconsistente monsteridentificatie of monsterdegradatie | Handhaaf de koppeling tussen gedrag en monster-ID's; standaardiseer het tijdstip van dissectie; vries monsters onmiddellijk snel in; houd monsters op ijs tijdens homogenisatie. |
| SD-muizen vertonen duidelijke tekenen van stress | Overmatig intensieve behandeling | Gebruik uitsluitend milde sensorische interventies; stop en volg de goedgekeurde welzijnsprocedures indien er tekenen van stress worden waargenomen. |
Tabel 2: Probleemoplossing. Veelvoorkomende problemen die optreden tijdens de NOR-, zorgvuldige slaapdeprivatie- en hippocampale biomarker-workflow, samen met mogelijke oorzaken en aanbevolen correctieve maatregelen.
Discussie
Dit artikel biedt een snel, reproduceerbaar kader voor het bestuderen van tekortkomingen in het herkenningsgeheugen en moleculaire veranderingen in de hippocampus die zijn veroorzaakt door acute slaapdeprivatie. Door direct na een gestandaardiseerde leerfase van 10 min gedurende 5 u een milde behandeling toe te passen, richt de procedure zich op een gedefinieerd consolidatievenster na het leren en is deze ontworpen om de fysieke belasting te verminderen die gepaard gaat met uitgebreide deprivatiemodellen of procedures op basis van geforceerde beweging4,5. Deze indiening bevat echter geen directe metingen van stresshormonen om een lagere fysiologische stressrespons te bevestigen, zoals hieronder besproken onder de beperkingen van de methode.
De meest kritische technische factoren zijn habituatie, consistente objectselectie, een vaste timing van het retentie-interval van 5 h en continue maar niet-aversieve monitoring tijdens GH. Omdat NOR afhankelijk is van spontane exploratie, kunnen residuele angst of een gebrekkige habituatie aan de arena de objectexploratie onderdrukken en geheugen-gerelateerde effecten maskeren8. Het vooraf vastgestelde uitsluitingscriterium voor de exploratietijd en het interventielogboek bieden praktische kwaliteitscontroles die helpen om een mislukte gedragstest te onderscheiden van een echt geheugenfenotype. Wanneer de algehele exploratie laag is, de voorkeur voor een nieuw object ontbreekt bij NSD-controles, de aantallen GH-interventies aanzienlijk variëren, biomarkermetingen een hoge variabiliteit vertonen of SD-muizen duidelijke stress vertonen, dienen onderzoekers de overeenkomstige procedures voor probleemoplossing in Tabel 2 te raadplegen voordat het experiment wordt herhaald of geïnterpreteerd.
In plaats van een eenvoudige opeenvolging van eerder vastgestelde technieken, ligt de incrementele bijdrage van dit protocol in vier specifieke operationele elementen die bedoeld zijn om de reproduceerbaarheid aan te pakken in plaats van de beschikbaarheid van de techniek. Ten eerste introduceert het verplichte interventielogboek (Protocol stap 3 en Tabel 1) een kwantificeerbaar, vergelijkbaar verslag voor het standaardiseren van de GH-intensiteit over cohorten en studies heen. De techniek zelf heeft een gevestigde geschiedenis, terwijl het huidige protocol de nadruk legt op de operationele standaardisatie van de implementatie ervan. Dit is consistent met de gevestigde geschiedenis van GH als een techniek voor totale slaapdeprivatie en het eerder opgemerkte gebrek aan standaardisatie bij de implementatie ervan in verschillende studies6. Ten tweede legt het protocol een ontwerp met hetzelfde cohort op, waarbij gedragsmatige en moleculaire eindpunten worden verzameld van identieke, individueel gevolgde dieren binnen een enkele pipeline van 10 dagen; dit ontwerp is bedoeld om variatie te verminderen die gepaard gaat met het verzamelen van gedragsmatige en biochemische eindpunten in afzonderlijke cohorten. Ten derde fixeert het protocol het trainings- en deprivatievenster aan een gedefinieerd circadiaans ankerpunt (ZT1, Protocol stap 2) en vereist dat NSD- en SD-cohorten onder overeenkomstige lichtfasecondities worden gehouden (Protocol stap 3), waardoor de circadiaanse timing binnen de workflow wordt gecontroleerd. Ten vierde specificeert het protocol a priori kwaliteitscontrole- en analysecriteria, waaronder een minimale drempelwaarde voor de exploratietijd (Protocol stap 7), transparante rapportage van uitsluitingen, prospectieve power-planning, toetsing van de DI tegen het kansniveau van 0,5, toetsing van aannames, correctie voor meerdere biomarkervergelijkingen en rapportage van de effectgrootte. Samen zetten deze elementen individueel vastgestelde methoden om in een expliciete, overdraagbare workflow die wordt voorgesteld als een kandidaat-referentiekader waaraan individuele laboratoria hun eigen implementatie kunnen benchmarken, in afwachting van onafhankelijke adoptie en replicatie, in plaats van als een verslag van een specifieke biologische bevinding.
De workflow kent enkele beperkingen. GH is arbeidsintensief en vereist voortdurende aandacht van de experimentator, wat de doorvoer beperkt. Daarnaast houdt GH de waakzaamheid in stand, maar kwantificeert het op zichzelf de slaaparchitectuur niet. Toekomstige toepassingen kunnen een EEG/EMG-validatie op een pilotgroep bevatten om waaktoestanden te documenteren en de mate van slaapverlies door de GH-procedure te verifiëren voordat de workflow op een volledige experimentele cohort wordt toegepast. Toekomstige toepassingen kunnen ook corticosteronmetingen bevatten om stressgerelateerde effecten van de interventie te evalueren. Deze metingen maken geen deel uit van het huidige protocol en mogen daarom niet worden geïnterpreteerd als validatie die in deze studie is uitgevoerd. NOR is gevoelig voor het herkenningsgeheugen, maar beoordeelt ruimtelijke navigatie of het werkgeheugen niet uitgebreid; complementaire assays zoals de Y-maze, Barnes-maze of andere one-trial-taken kunnen worden toegevoegd wanneer een breder cognitief profiel vereist is. De gemodificeerde methode met meerdere platforms vormt een alternatieve benadering voor het experimenteel opwekken van slaapverlies en is gebruikt om slaapverlies en herstel te kwantificeren4; in tegenstelling hiermee legt de huidige GH-workflow de nadruk op een milde sensorische interventie zonder geforceerde locomotie. Omdat fysiologische stressmarkers in dit protocol echter niet direct zijn gemeten, kan hier geen conclusie worden getrokken dat GH een lagere fysiologische stressrespons veroorzaakt.
De methode moet daarom bij voorkeur worden beschouwd als een gestandaardiseerd instapplatform in plaats van een volledig model voor alle cognitieve gevolgen van slaapgebrek. De waarde ervan ligt in de expliciete koppeling tussen een gecontroleerde GH-interventie na het leren, een gedragsmatige read-out die is ontworpen om fysieke handelingen tot een minimum te beperken in vergelijking met paradigma's voor geforceerde voortbeweging, de collectie van de hippocampus uit hetzelfde dier en transparante kwaliteitscontroles. NOR biedt een goed gevestigde one-trial benadering voor het beoordelen van het herkenningsgeheugen7,8, en slaapdeprivatie is eerder geassocieerd met een verslechterde objectherkenning9, neuro-inflammatoire veranderingen in de hippocampus10 en oxidatieve stress in de hippocampus en geheugendeficiënties11. Bijgevolg kan dit kader vergelijkingen tussen cohorten vergemakkelijken en een praktische basis bieden voor mechanistische studies en het screenen van interventies die bedoeld zijn om de aan slaapdeprivatie gerelateerde cognitieve beperkingen te verminderen; eerder onderzoek heeft ook interventies onderzocht die gericht zijn op de aan slaapdeprivatie gerelateerde cognitieve beperkingen en neuro-inflammatie12. In overeenstemming met deze reikwijdte richt de huidige indiening zich op het vaststellen en standaardiseren van de reproduceerbare workflow, terwijl er representatieve gegevens worden verstrekt die de prestaties van het protocol aantonen; een uitgebreidere dataset en een bredere biologische interpretatie kunnen afzonderlijk in toekomstig werk worden gerapporteerd.
Openbaarmakingen
De auteurs verklaren dat er geen belangenverstrengelingen zijn.
Dankbetuigingen
Dit werk werd ondersteund door het Nanjing Drum Tower Hospital Youth Cultivation Fund, de National Natural Science Foundation of China (Grant No. 82502706) en het Basic Research Program of Jiangsu (Grant No. BK20250258). AI-ondersteunde tools werden gebruikt tijdens de voorbereiding en revisie van het manuscript, inclusief voor het opstellen en verfijnen van de tekst en het genereren en verfijnen van schematische figuren.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 70% ethanol | Elke leverancier | Niet van toepassing | Reiniging van de NOR-arena en objecten |
| Volwassen mannelijke C57BL/6J-muizen (8–12 weken) | Zhejiang AILIMO Biotechnology Co., Ltd. | Geen gegevens beschikbaar | Proefdieren |
| BCA-eiwitanalysekit | Thermo Fisher Scientific (Pierce) | 23225 | Bepaling en normalisatie van de totale eiwitconcentratie |
| Software voor gedragsanalyse | Noldus Information Technology B.V. | EthoVision XT versie 17.5 | Scoring en analyse van NOR-exploratie |
| Centrifuge die in staat is tot 14.000 × g at 4 °C | Eppendorf | Centrifuge 5424 R; Cat. 5404000610 | Klarificatie van hippocampale homogenaten |
| Schoonmaken van papieren buizen | Elke leverancier | Omdat er geen brontekst is verstrekt, kan ik geen vertaling genereren. Voeg de Engelse tekst toe die u wilt laten vertalen naar het Nederlands. | Interventie met milde hantering |
| Persoonlijke beschermingsmiddelen voor cryogene toepassingen | Elke leverancier | Omdat er geen brontekst is verstrekt, kan ik geen vertaling genereren. Gelieve de tekst aan te leveren die vertaald moet worden. | Veilig omgaan met vloeibare stikstof |
| Glutathionperoxidase-assaykit | Abcam | ab102530 | Kwantificering van GPx |
| Hippocampale weefselhomogenisator | IKA-Werke GmbH & Co. KG | T 10 basic ULTRA-TURRAX; Cat. 0003737000 | Homogenisatie van hippocampusweefsel in lysisbuffer |
| Vloeibare stikstof | Elke leverancier | Als u geen brontekst heeft opgegeven, kan ik geen vertaling produceren. Voer aub de Engelse tekst in die u naar het Nederlands vertaald wilt hebben. | Snelbevriezen van gedissecteerde hippocampi |
| MDA-assaykit | Sigma-Aldrich | MAK085 | MDA-kwantificering |
| Microplaatlezer | Agilent Technologies / BioTek | BioTek Epoch 2 microplaat-spectrofotometer | Absorbantiemeting bij de in de kit gespecificeerde golflengten |
| Microspatels | Elke leverancier | Omdat er geen brontekst is verstrekt, kan ik geen vertaling genereren. Raadpleeg aub de brontekst die u vertaald wilt hebben. | Dissectie van de hippocampus; gekoeld gebruikt |
| Muis IL-1β ELISA-kit | R&D Systems | MLB00C | IL-1β kwantificering |
| Muizen IL-6 ELISA-kit | R&D Systems | M6000B | Kwantificering van IL-6 |
| Muismuis TNF-α ELISA-kit | R&D Systemen | MTA00B | TNF-α kwantificering |
| Objectsets A/A′ en B | Elke leverancier | Omdat er geen brontekst is verstrekt, kan ik geen vertaling uitvoeren. Voer aub de tekst in die u vertaald wilt hebben. | Familiarisatiefase en testfase van de NOR |
| Ondoorzichtige NOR-arena (40 cm × 40 cm × 40 cm) | Elke leverancier | N/V | Gedragstests |
| Overhead video-opnamesysteem | Basler AG | acA1300-60gm | Videopresentatie van de NOR- привыка- en testsessies |
| Protease-/fosfataseremmercocktail | Thermo Fisher Scientific (Thermo Scientific) | 78440 | Toegevoegd aan lysisbuffer bij 1× werkconcentratie (10 µL/mL van een 100× voorraad) |
| RIPA-lysisbuffer | Thermo Fisher Scientific | 89900 | Homogenisatie van hippocampusweefsel |
| Monsterbuisjes geschikt voor cryogene bewaring | Thermo Fisher Scientific (Nunc) | Nunc CryoTube, 1,8 mL; Cat. 375418 | Beheer van dierspecifieke monster-ID's en opslag van gedissecteerd hippocampusweefsel |
| Zachte kwast | Elke leverancier | Vanwege het ontbreken van brontekst kan er geen vertaling worden geleverd. Voer aub de Engelse tekst in die vertaald moet worden naar het Nederlands. | Interventie met zachte hantering |
| SOD-assaykit | Sigma-Aldrich | 19160 | SOD-kwantificering |
| Software voor statistische analyse en poweranalyse | G*Power; Python Software Foundation | G*Power versie 3.1; Python versie 3.12 (SciPy 1.17; statsmodels 0.14) | A priori poweranalyse en statistische analyses zoals beschreven in Protocol Sectie 7 |
| Standaard knaagdiervoer | Jiangsu Xietong Pharmaceutical Bio-engineering Co., Ltd. | Onderhoudsdieet voor bestraalde ratten/muizen; XTI01WC-010 | Ad libitum voeding van dieren |
| −80 °C vriezer | Haier Biomedical | DW-86L626 | Langetermijnopslag van snel ingevroren hippocampusweefsel |
Referenties
- Walker MP, Stickgold R. Sleep, memory, and plasticity. Annual Review of Psychology. 2006;57:139-166.
- Musiek ES, Holtzman DM. Mechanisms linking circadian clocks, sleep, and neurodegeneration. Science. 2016;354(6315):1004-1008.
- Havekes R, Abel T. The tired hippocampus: the molecular impact of sleep deprivation on learning and memory. Current Opinion in Neurobiology. 2017;44:33-39.
- Machado RB, Hipólide DC, Benedito-Silva AA, Tufik S. Sleep deprivation induced by the modified multiple platform technique: quantification of sleep loss and recovery. Brain Research. 2004;1004(1-2):45-51.
- Hagewoud R, et al. Sleep deprivation impairs spatial working memory and reduces clearance of hippocampal β-amyloid in rats. Neurobiology of Aging. 2013;34(1):22-30.
- Fenzl T, et al. Fully automated sleep deprivation in mice as a tool in sleep research. J Neurosci Methods. 2007;166(2):229-35.
- Ennaceur A, Delacour J. A new one-trial test for neurobiological studies of memory in rats. 1: Behavioral data. Behavioural Brain Research. 1988;31(1):47-59.
- Leger M, et al. Object recognition test in mice. Nature Protocols. 2013;8(12):2531-2537.
- Palchykova S, et al. Sleep deprivation impairs object recognition in mice. Neurobiology of Learning and Memory. 2006;85(3):263-271.
- Wadhwa M, et al. Sleep deprivation induces spatial memory impairment by altered hippocampus neuroinflammation and microglia activation in rats. Journal of Neuroimmunology. 2011;238(1-2):14-23.
- Silva RH, et al. Role of hippocampal oxidative stress in memory deficits induced by sleep deprivation in mice. Neuropharmacology. 2016;104:1-8.
- Wang Y, et al. Ellagic acid ameliorates sleep deprivation-induced cognitive impairment and neuroinflammation in mice. Aging. 2020;12(10):10327-10340.