Dit protocol presenteert een methode voor het genereren van vasculaire organoïden met behulp van menselijke geïnduceerde pluripotente stamcellen.
Methodenartikel
Een geoptimaliseerd protocol voor de generatie van vasculaire organoïden uit menselijke geïnduceerde pluripotente stamcellen
In dit artikel
Samenvatting
Samenvatting
Vasculaire organoïden afgeleid van humane pluripotente stamcellen (hPSCs) zijn ontstaan als krachtige driedimensionale modellen voor het bestuderen van vasculaire ontwikkeling, ziekte mechanismen en medicijnresponsen. Huidige protocollen voor vasculaire organoïden maken de generatie van zelforganiserende endotheel-pericytennetwerken mogelijk; echter, variabiliteit tussen batches, inconsistente organoïdevorming en onvoldoende pericytbedekking kunnen de reproduceerbaarheid en schaalbaarheid belemmeren. Deze studie presenteert een geoptimaliseerd protocol voor het genereren van vasculaire organoïden uit humane geïnduceerde pluripotente stamcellen (hiPSCs) met verbeterde reproduceerbaarheid en structurele consistentie. Belangrijke aanpassingen omvatten verfijnde condities voor de vorming van embryoïde lichaampjes, geoptimaliseerde concentraties en timing van groeifactoren tijdens mesoderminductie en vasculaire specificatie, en verbeterde driedimensionale kweekcondities die een robuuste rekrutering van pericyten en endotheel-pericyteninteracties bevorderen. De geoptimaliseerde organoïden vertonen sterk vertakte CD31-positieve endotheelnetwerken die consistent zijn omsloten door PDGFR-β-positieve pericyten, met een significant verminderde variabiliteit tussen batches vergeleken met het oorspronkelijke protocol. Gedetailleerde stap-voor-stap procedures worden verstrekt voor de generatie van organoïden, whole-mount immunofluorescentie karakterisering en kwaliteitscontrolebeoordeling. Deze geoptimaliseerde methode maakt de schaalbare productie van hoogwaardige vasculaire organoïden mogelijk die geschikt zijn voor het bestuderen van vasculaire celinteracties, het modelleren van ziekten en het screenen van verbindingen, waardoor de technische drempel wordt verlaagd voor laboratoria die dit modelsysteem willen adopteren.
Inleiding
Driedimensionale (3D) organoïden zijn krachtige instrumenten geworden voor het modelleren van de menselijke orgaanontwikkeling en ziekten in vitro, waarbij ze een superieure structurele biomimetica en pathofysiologische relevantie bieden in vergelijking met conventionele tweedimensionale celcultuurmodellen1,2. In recente jaren zijn organoïden afgeleid van menselijke pluripotente stamcellen (hPSC) succesvol gevestigd voor meerdere weefseltypen, waaronder de darm3, hersenen4,5, nieren6, lever7,8 en retina9. Een grote uitdaging bij onderzoek op basis van organoïden is echter onvoldoende vascularisatie tijdens langdurige cultuur, wat kan leiden tot hypoxie en necrose, waardoor de expansie en differentiatie van de organoïden worden belemmerd10,11. Om deze beperking aan te pakken, zijn verschillende co-cultuurstrategieën geïntroduceerd, waaronder de integratie van endotheelcellen of mesenchymale stamcellen om de vorming van vasculaire netwerken te bevorderen12,13. Conventionele tweedimensionale culturen en diermodellen bootsen de menselijke vasculaire biologie echter niet volledig na, terwijl co-cultuurbenaderingen extra experimentele complexiteit introduceren14. Vasculaire organoïden die in staat zijn tot autonome vascularisatie bieden daarom een veelbelovend, mens-relevant alternatief15.
De vorming van het vasculaire netwerk omvat zowel vasculogenese als angiogenese, die worden aangestuurd door interacties tussen endotheelcellen en murale cellen, zoals pericyten en vasculaire gladde spiercellen, en die strak gereguleerd worden door meerdere signaleringsmoleculen, waaronder VEGF (vascular endothelial growth factor), TGF-β (transforming growth factor-β), PDGF (platelet-derived growth factor) en angiopoïetinen16. In 2019 ontwikkelden Wimmer en collega's een methode voor het genereren van zelfassemblerende 3D-bloedvat-organoïden direct vanuit hPSC's17,18. Dit systeem genereert gelijktijdig endotheelcellen en pericyten, wat resulteert in microvasculaire netwerken met lumenvorming en bedekking door een basale membraan. Op basis van dit platform zijn vasculaire organoïden gebruikt om diabetische vasculopathie te modelleren onder stimulatie met hoge glucoseconcentraties en pro-inflammatoire cytokinen (TNF-α en IL-6); deze organoïden recapituleren de verdikking van de basale membraan, een kenmerk van diabetische microvasculaire pathologie17. Daarnaast is dit model gebruikt om erfelijke vasculaire aandoeningen te bestuderen en om te dienen als platform voor screening op vasculaire toxiciteit19. Recentelijk hebben verschillende methodegeoriënteerde studies gepoogd de generatie van vasculaire organoïden te optimaliseren. Zo hebben vorderingen in single-cell RNA-sequencing belangrijke regulerende factoren geïdentificeerd, zoals MECOM en LEF1, waardoor een moleculair kader is ontstaan voor het karakteriseren en optimaliseren van de vorming van menselijke vasculaire organoïden. Bovendien introduceerden Xu et al. microwells om homogene vorming van embryoid bodies te faciliteren en voegden zij de CEPT-cocktail toe om de celviabiliteit te verbeteren, waardoor de batch-to-batch variabiliteit effectief werd verminderd20.
Om de homogeniteit, reproduceerbaarheid en doorvoersnelheid van de generatie van vasculaire organoïden te verbeteren, is het oorspronkelijke protocol beschreven door Wimmer et al.17,18 systematisch geoptimaliseerd om verschillende belangrijke beperkingen aan te pakken. Ten eerste maakt het oorspronkelijke protocol gebruik van natuurlijke aggregatie in low-attachment plates voor de vorming van embryoid bodies, wat kan leiden tot aanzienlijke variabiliteit tussen batches in aggregaatgrootte en bijgevolg een heterogene differentiatie-efficiëntie. In het geoptimaliseerde protocol wordt polyvinylalcohol (PVA) gecombineerd met orbitale schudding tijdens de aggregaatvorming om uniforme celaggregatie te bevorderen en de consistentie van de grootte van de embryoid bodies te verbeteren. Ten tweede maakt het oorspronkelijke protocol gebruik van volledige vervanging van het medium tijdens de fase van vasculaire netwerkvorming, wat kan leiden tot aanzienlijke schommelingen in de concentraties van groeifactoren en het aanhoudende vasculaire uitloping en de rekrutering van pericyten kan belemmeren. In tegenstelling hiermee behoudt het geoptimaliseerde protocol één derde van het geconditioneerde medium bij elke mediumwissel om endogene pro-angiogene factoren te behouden en de cultuuromgeving te stabiliseren. Ten derde vereist het oorspronkelijke protocol meerdere plaattransfers tijdens de isolatie en rijping van organoïden, wat de handlingsvereisten en het risico op verlies van organoïden verhoogt. Het geoptimaliseerde protocol omzeilt deze stappen door geïsoleerde organoïden individueel over te brengen naar wells van 96-well low-attachment plates, waardoor de procedure wordt vereenvoudigd en de doorvoersnelheid toeneemt. Collectief biedt dit geoptimaliseerde protocol gedetailleerde stapsgewijze procedures en kritische kwaliteitscontrolepunten om de technische drempel voor de adoptie van dit modelsysteem te verlagen en de bredere toepassing van vasculaire organoïden in studies naar vasculaire ontwikkeling, ziekte-mechanismen en high-throughput drug screening te faciliteren.
Protocol
Het gebruik van hPSCs in deze studie is goedgekeurd door de Biomedische Ethiekcommissie van de Anhui Universiteit (BECAHU_2026-010).
1. Onderhoud van menselijke geïnduceerde pluripotente stamcellen
OPMERKING: Houd menselijke geïnduceerde pluripotente stamcellen (hiPSCs) onder feeder-vrije omstandigheden. Voer alle procedures uit in een biologische veiligheidskabinet klasse II met gebruik van aseptische technieken.
- Preparatie van met basement membraanmatrix gecoate kweekplaten
- Haal een vial basement membraanmatrix uit −20 °C en ontdooi deze gedurende de nacht bij 4 °C gedurende ongeveer 12–16 h. Vermijd herhaalde vries-dooi-cycli.
- Meng de ontdooide basement membraanmatrix grondig onder steriele omstandigheden en verdeel deze in aliquots voor eenmalig gebruik (bijv. 1 mL per buis). Bewaar de aliquots bij −20 °C tot 2 jaar.
OPMERKING: Houd de basement membraanmatrix, pipetten, tips en buizen koud tijdens de verwerking om voortijdige stolling te voorkomen. Vermijd het ontstaan van luchtbellen. - Ontdooi de benodigde aliquot basement membraanmatrix op ijs. Verdun de basement membraanmatrix 1:200 in voorkoelde DMEM (5 µL basement membraanmatrix per 1 mL DMEM; uiteindelijke concentratie, ongeveer 5 µg/mL).
- Meng de oplossing voorzichtig door te pipetteren totdat er geen zichtbare deeltjes meer aanwezig zijn.
- Voeg 0,5 mL van de verdunde basement membraanmatrix toe aan elke well van een 12-wells plaat. Kantel en roteer de plaat voorzichtig om het gehele bodemoppervlak te coaten.
- Incubeer de gecoate plaat bij 37 °C in een 5% CO₂-incubator gedurende ten minste 2 h of bij 4 °C gedurende de nacht.
OPMERKING: Bewaar afgesloten gecoate platen bij 4 °C gedurende 1–2 weken. Laat de plaat acclimatiseren naar kamertemperatuur en aspireer de coatingoplossing vlak voor gebruik.
- Ontdooien van hiPSCs
- Haal een cryovial met bevroren hiPSCs uit vloeibare stikstof en plaats deze onmiddellijk in een waterbad van 37 °C. Agiteer de vial voorzichtig en haal deze binnen 1 min uit het bad, wanneer er slechts enkele kleine ijskristallen over zijn.
OPMERKING: Vermijd langdurige blootstelling aan dimethylsulfoxide (DMSO) bij 37 °C en onvolledig ontdooien, aangezien beide de celviabiliteit kunnen verminderen. - Desinfecteer de buitenkant van de cryovial met 70% ethanol en open deze in de biologische veiligheidskabinet.
- Overbreng de celsuspensie langzaam druppelsgewijs naar een 15 mL conische buis met 3 mL voorverwarmd chemisch gedefinieerd hPSC-onderhoudsmedium, of een equivalent chemisch gedefinieerd onderhoudsmedium. Meng voorzichtig tijdens de overdracht om de DMSO geleidelijk te verdunnen en osmotische stress te minimaliseren.
- Centrifugeer de cellen bij 300 × g gedurende 3 min bij kamertemperatuur (22–24 °C) met behulp van een swing-bucket rotor.
- Aspireer voorzichtig het supernatant zonder de celpellet te verstoren. Resuspendeer de pellet voorzichtig in 1 mL voorverwarmd chemisch gedefinieerd hPSC-onderhoudsmedium.
OPMERKING: Gebruik een P1000-pipet en pipetteer voorzichtig 2–3 keer om mechanische schuifspanning en belvorming te minimaliseren.
- Haal een cryovial met bevroren hiPSCs uit vloeibare stikstof en plaats deze onmiddellijk in een waterbad van 37 °C. Agiteer de vial voorzichtig en haal deze binnen 1 min uit het bad, wanneer er slechts enkele kleine ijskristallen over zijn.
- Uitplaten en kweek van hiPSCs
- Haal de vooraf gecoate 12-wells plaat uit de incubator en aspireer de coatingoplossing. Was de wells niet.
- Zaai ongeveer 1 × 10⁵–2 × 10⁵ viabele cellen per well voor routinematig herstel na het ontdooien. Pas de dichtheid aan op basis van de hiPSC-lijn en de experimentele vereisten.
- Dispenseer de celsuspensie langzaam langs de wand van elke well zonder met de pipetpunt het gecoate oppervlak te raken.
- Voeg Y-27632 toe tot een uiteindelijke concentratie van 5 µM om de celoverleving en aanhechting na het ontdooien te bevorderen.
OPMERKING: Gebruik Y-27632 alleen in het initiële platingmedium. Vervang dit de volgende dag door Y-27632-vrij chemisch gedefinieerd hPSC-onderhoudsmedium. - Incubeer de cellen bij 37 °C met 5% CO₂ en verzadigde vochtigheid.
- Controleer de celaanhechting en morfologie na ongeveer 16–24 h. Aspireer het medium en vervang het door vers, voorverwarmd chemisch gedefinieerd hPSC-onderhoudsmedium zonder Y-27632.
- Vervang het medium dagelijks of om de dag totdat de cellen ongeveer 70%–80% confluentie bereiken voor passaging of differentiatie.
OPMERKING: Controleer de culturen dagelijks. Gebruik kolonies met compacte, scherp gedefinieerde randen, een hoge kern-cytoplasma-ratio en minimale spontane differentiatie.
2. Generatie en differentiatie van hiPSC-aggregaten
OPMERKING: Houd hiPSCs onder feeder-vrije condities in chemisch gedefinieerd hPSC-onderhoudsmedium op platen gecoat met basementmembraanmatrix. Passageer de cellen elke 4–5 dagen met 0,02% EDTA. Gebruik culturen met een passende zaaidichtheid en koloniegrootte en minimale spontane differentiatie om de efficiëntie van de vasculaire differentiatie te maximaliseren.
- Bereiding van een enkelcellesuspensie
- Zuig het chemisch gedefinieerde hPSC-onderhoudsmedium af en was de hiPSCs met 0,5 mL DMEM per putje van een 6-wells plaat.
- Zuig het DMEM af en voeg 0,5 mL 0,02% EDTA per putje toe. Incubeer bij kamertemperatuur gedurende 2–4 min en monitor de cellen totdat ze beginnen af te ronden.
- Los de cellen los met een P1000-pipet. Pipetteer voorzichtig 2–3 keer om de aggregaten te dissociëren tot een enkelcellesuspensie.
- Resuspendeer de cellen in 5 mL chemisch gedefinieerd hPSC-onderhoudsmedium en overbreng de suspensie naar een conische buis van 15 mL.
- Meng 10 µL van de cellsuspensie met 10 µL 0,1% Trypaanblauw-oplossing. Breng 10 µL van het mengsel aan op een telkamer en bepaal het aantal levensvatbare cellen.
- Bereken het volume cellsuspensie dat nodig is om 5 × 10⁵ levensvatbare cellen per putje te verkrijgen.
- Centrifugeer de cellen bij 300 × g gedurende 5 min bij kamertemperatuur (22–23 °C). Zuig het supernatant af.
- Resuspendeer de cellen in vers chemisch gedefinieerd hPSC-onderhoudsmedium met 50 µM Y-27632 in een volume van 3 mL per putje.
- Aggregaatvorming
- Voeg 3 mL van de cellsuspensie toe aan elk putje van een low-attachment 6-wells plaat. Voeg PVA toe tot een eindconcentratie van 0,25%.
- Plaats de plaat op een orbitale schudder bij 50 rpm en incubeer bij 37 °C gedurende 1 dag.
- Bevestig de vorming van aggregaten met gladde randen en een diameter van ongeveer 50–100 µm of groter voordat u verdergaat.
- OPMERKING: Optimaliseer de aggregatieperiode voor individuele hiPSC-lijnen. Verleng de incubatie naar 2–3 dagen indien nodig om aggregaten van de gewenste grootte te verkrijgen.
- Mesoderm-inductie
- Overbreng op Dag 0 de aggregaten naar een conische buis van 15 mL met een steriele wegwerppipet van 10 mL. Bewaar de oorspronkelijke low-attachment plaat voor het opnieuw uitplaten.
- Laat de aggregaten ongeveer 15–20 min bezinken door zwaartekracht.
- OPMERKING: Behandel de aggregaten voorzichtig en gebruik zwaartekrachtsedimentatie in plaats van centrifugatie om mechanische schade te minimaliseren.
- Zuig het supernatant voorzichtig af nadat de aggregaten zijn bezonken.
- Resuspendeer de aggregaten in 3 mL per putje N2B27-medium aangevuld met 12 µM CHIR99021 en 30 ng/mL BMP-4.
- Overbreng de aggregaten terug naar de low-attachment plaat en incubeer bij 37 °C.
- Pipetteer de aggregaten eenmaal per dag voorzichtig met een P1000-pipet om overmatige aggregaatfusie te minimaliseren. Zet de mesoderm-inductie voort gedurende 3 dagen.
- Inductie van de vasculaire lijn
- Overbreng op Dag 3 de aggregaten naar een conische buis van 15 mL en laat ze bezinken door zwaartekracht. Bewaar de oorspronkelijke 6-wells plaat.
- Zuig het supernatant voorzichtig af nadat de aggregaten zijn bezonken.
- Resuspendeer de aggregaten in 3 mL per putje N2B27-medium aangevuld met 100 ng/mL VEGF-A en 2 µM forskoline.
- Overbreng de aggregaten terug naar de low-attachment 6-wells plaat en incubeer nog eens 2 dagen.
3. Generatie van vasculaire netwerken en organoïden
- Bereiding van de collageen I–basaalmembraanmatrix
- Verzamel de aggregaten die zijn gegenereerd in één 6-well plaat voor inbedding in één 12-well plaat. Gebruik ongeveer 40–60 aggregaten per well.
- Bereid voldoende collageen I–basaalmembraanmatrixmengsel om twee lagen van 0,5 mL aan elke well van de 12-well plaat toe te voegen.
- Bereid 12 mL matrix voor één 12-well plaat. Houd alle componenten op ijs, bereid het mengsel vlak voor gebruik en voorkom de vorming van luchtbellen.
- Voeg 0,5 mL matrix toe aan elke well van de 12-well plaat. Draai de plaat voorzichtig rond om de matrix gelijkmatig te verdelen.
- Incubeer de plaat gedurende 2 u bij 37 °C om de eerste matrixlaag te laten stollen.
- Inbedding van aggregaten
- Overbreng de aggregaten naar een conische buis van 15 mL met een steriele wegwerppipet van 10 mL en laat ze door zwaartekracht bezinken.
- Aspireer het supernatant en was de aggregaten twee keer met 1 mL N2B27-medium. Verwijder na de laatste wasstap zoveel mogelijk residueel medium.
- Bereid een vers collageen I–basaalmembraanmatrixmengsel en houd dit op ijs.
- Resuspendeer de gewassen aggregaten voorzichtig in de vers bereide matrix.
- Haal de 12-well plaat met de gestolde eerste laag uit de incubator.
- Voeg 0,5 mL van de matrix met aggregaten toe aan elke well.
- Schud de plaat voorzichtig gedurende maximaal 1 min om de aggregaten gelijkmatig te verdelen.
- Incubeer de plaat onmiddellijk gedurende 2 u bij 37 °C om de tweede laag te laten stollen.
- Inductie van vasculaire sprouting
- Warm N2B27-medium, aangevuld met 15% FBS, 100 ng/mL VEGF-A en 100 ng/mL FGF-2, voor tot 37 °C.
- Voeg het voorverwarmde, aangevulde medium toe aan elke well om vasculaire differentiatie te induceren.
- Monitor de culturen gedurende de volgende 1–3 dagen op vasculaire sprouting.
- OPMERKING: Warm het medium voor tot 37 °C voordat het aan de culturen wordt toegevoegd om destabilisatie van de gelmatrix te minimaliseren.
- Mediumverversing en onderhoud van de culturen
- Voer de eerste mediumverversing 3 dagen na de inbedding uit.
- Vervang het medium daarna om de dag door vers N2B27-medium met 15% FBS, 100 ng/mL VEGF-A en 100 ng/mL FGF-2.
- Behoud bij elke mediumverversing één derde van het geconditioneerde medium en vervang de overige twee derde door vers aangevuld medium.
- Ga op dag 10 verder met de isolatie van vasculaire organoïden.
4. Vestiging van vasculaire organoïden en voorbereiding voor kleuring
- Isolatie van individuele vasculaire netwerken
- Steek het afgeronde uiteinde van een steriele spatel langs de rand van de put en laat de gelmatrix voorzichtig los van de bodem.
- Beweeg de spatel verder van de rand van de put naar het midden totdat de gehele gelmatrix vrij drijft.
- Gebruik twee steriele naalden om individuele vasculaire netwerken uit de gel te excideren. Verwijder zoveel mogelijk overtollige matrix zonder het vasculaire netwerk te beschadigen.
- Kweek van geïsoleerde organoïden
- Overbreng elke geïsoleerde organoïde direct naar een individuele put van een low-attachment 96-wells plaat met een steriele wegwerppipet.
- Voeg 100 µL N2B27-medium aan elke put toe, aangevuld met 15% FBS, 100 ng/mL VEGF-A en 100 ng/mL FGF-2.
- Incubeer de organoïden nog 5 dagen en vervang het aangevulde medium dagelijks.
- Bevestig dat de organoïden op dag 5 van de rijping een ronde en volledig ingekapselde morfologie vertonen.
- Fixatie van vasculaire organoïden
- Overbreng morfologisch rijpe organoïden naar 2 mL microcentrifugebuisjes. Verwerk niet meer dan ongeveer 60 organoïden per buisje.
- Aspireer voorzichtig het medium en voeg 4% paraformaldehyde (PFA) in PBS toe.
- Fixeer de organoïden gedurende 1 h bij kamertemperatuur.
WAARSCHUWING: PFA is toxisch en een vermoedelijk carcinogeen. Hanteer PFA in een chemische zuurkast terwijl u geschikte persoonlijke beschermingsmiddelen draagt. - Aspireer de PFA en vervang deze door PBS.
PAUSEERPUNT: Bewaar gefixeerde vasculaire organoïden in PBS bij 4 °C voor maximaal 1 maand.
5. Kleuring en confocale beeldvorming van vasculaire organoïden
- Blocking en permeabilisatie
- Voeg 2 mL blockingbuffer toe aan elke buis met gefixeerde vasculaire organoïden.
- Plaats de buizen verticaal op een orbitale schudmachine en incubeer met agitatie bij kamertemperatuur gedurende 2 u om de organoïden te blocken en te permeabiliseren.
- Incubatie met primaire antilichamen
- Aspireer de blockingbuffer en voeg 50–100 µL primair antilichaam toe, verdund 1:100 in blockingbuffer.
- Plaats de buizen rechtop op een schudmachine en incubeer met agitatie bij 4 °C gedurende de nacht.
- Wassen en incubatie met secundaire antilichamen
- Was de monsters drie keer met PBST gedurende 10–15 min per wasbeurt. Agiteer de verticaal geplaatste buizen tijdens elke wasbeurt.
- Voeg fluorescent secundair antilichaam toe, verdund 1:300 in blockingbuffer.
- Incubeer de monsters bij kamertemperatuur gedurende 2 u.
- Nucleaire tegenkleuring en laatste wasbeurt
- Was de monsters twee keer met PBST gedurende 10–15 min per wasbeurt.
- Voeg Hoechst-oplossing toe, verdund 1:5.000 in PBS, en incubeer bij kamertemperatuur gedurende 10–15 min.
- Was de monsters met PBS gedurende 10–15 min.
- Confocale beeldvorming
- Breng de gekleurde organoïden over naar schaaltjes voor confocale beeldvorming.
- Neem confocale beelden op met consistente beeldvormingsparameters over de experimentele groepen heen.
- Kwantitatieve beeldanalyse van vasculaire organoïden
OPMERKING: Voer de kwantitatieve beeldanalyse uit met Fiji/ImageJ en AngioTool. Houd identieke acquisitie-instellingen van de microscoop aan voor alle experimentele groepen.- Meting van de aggregaatdiameter
- Neem bright-field beelden op van hiPSC-aggregaten van dag 0 met een omgekeerde microscoop met een gekalibreerde schaal. Fotografeer goed gescheiden aggregaten en voeg een schaalbalk toe.
- Importeer elke afbeelding in Fiji/ImageJ. Trek met de Straight Line-tool een lijn langs de schaalbalk en selecteer Analyze > Set Scale.
- Voer de bekende afstand en eenheid in (bijv. 100 µm) en selecteer Global om de kalibratie toe te passen op alle afbeeldingen in de sessie.
- Trek met de Straight Line-tool een lijn over de breedste diameter van elk aggregaat. Selecteer Analyze > Measure of druk op Ctrl+M en noteer de diameter in µm.
- Meet ten minste 30 aggregaten per batch.
- Teken voor niet-sferische aggregaten de omtrek van elk aggregaat met de Oval- of Polygon Selection-tool. Selecteer Analyze > Set Measurements > Feret's diameter en noteer de meting.
- Exporteer de metingen uit de Resultaten-tabel en compileer de gegevens in een spreadsheet.
- Bereken het gemiddelde, de standaarddeviatie (SD) en de variatiecoëfficiënt (CV) als CV = SD/gemiddelde × 100% voor elke batch.
- Meting van de organoïdediameter
- Neem bright-field beelden op van volwassen vasculaire organoïden op dag 15 met een omgekeerde microscoop met een gekalibreerde schaal. Voeg aan elke afbeelding een schaalbalk toe.
- Importeer elke afbeelding in Fiji/ImageJ en kalibreer de schaal zoals beschreven in stap 6.1.2
- Trek met de Straight Line-tool een lijn over de breedste diameter van elke organoïde. Selecteer Analyze > Measure of druk op Ctrl+M en noteer de diameter in µm.
- Meet ten minste 30 organoïden per batch.
- Meet bij onregelmatig gevormde organoïden de langste en kortste diameters en bereken het gemiddelde, of bepaal de Feret-diameter zoals beschreven in stap 6.1.6.
- Exporteer de metingen en bereken het gemiddelde, de SD en de CV voor elke batch.
- Kwantificering van het CD31-positieve vasculaire areaal
- Neem confocale z-stack beelden op van whole-mount organoïden van dag 15 die gekleurd zijn voor CD31. Gebruik identieke lasersterkte, gain, offset en pinhole-instellingen voor alle monsters.
- Genereer maximum-intensiteitsprojecties (MIPs) uit de z-stacks met de microscoopsoftware of Fiji/ImageJ.
- Pas een intensiteitsdrempel toe om het CD31-positieve vasculaire netwerk te segmenteren, waarbij het achtergrondsignaal wordt uitgesloten.
- Selecteer Process > Noise > Remove Outliers en gebruik een straal van 2–5 pixels om kleine artefacten te verwijderen. Selecteer Process > Binary > Fill Holes om kleine openingen binnen het vasculaire netwerk op te vullen.
- Selecteer Analyze > Set Measurements en activeer Area en Area fraction. Selecteer Analyze > Measure om het vasculaire areaal te bepalen.
- Bereken het CD31-positieve vasculaire areaal als percentage van het totale areaal van de organoïde.
- Analyseer ten minste drie organoïden per batch uit drie onafhankelijke batches. Exporteer de metingen voor statistische analyse.
- Kwantificering van de PDGFR-β-positieve pericytenbedekking
- Neem confocale z-stack beelden op van whole-mount organoïden van dag 15 die gekleurd zijn voor CD31 en PDGFR-β. Genereer MIPs uit de z-stacks.
- Importeer de CD31- en PDGFR-β-MIPs in Fiji/ImageJ en verifieer de uitlijning van de beelden.
- Pas een drempelwaarde toe op het CD31-kanaal om een binair masker te genereren dat het vasculaire netwerk definieert.
- Pas een drempelwaarde toe op het PDGFR-β-kanaal met dezelfde segmentatieaanpak om een binair masker van het pericytensignaal te genereren.
- Selecteer Process > Image Calculator en pas de AND-operatie toe op de CD31- en PDGFR-β-maskers om overlappende pixels te identificeren.
- Meet het areaal van het overlappende signaal.
- Bereken de pericytenbedekking als (PDGFR-β-positief areaal binnen CD31-positieve vaten/totaal CD31-positief vasculaire areaal) × 100%.
- Analyseer ten minste drie organoïden per batch uit drie onafhankelijke batches. Exporteer de metingen voor statistische analyse.
- Analyse van de vertakkingsindex met AngioTool
- Neem confocale z-stack beelden op van whole-mount organoïden van dag 15 die gekleurd zijn voor CD31. Genereer MIPs uit de z-stacks.
- Start AngioTool en laad de MIP-afbeelding.
- Stel de vatdiameter in op basis van de typische vatdiameter die in de beelden is waargenomen.
- Pas de intensiteitsdrempel aan om het vasculaire netwerk te segmenteren, terwijl het achtergrondsignaal wordt uitgesloten. Stel de minimale vatgrootte in om kleine artefacten uit te sluiten.
- Voer de analyse uit en noteer het vatareaal, de vatdichtheid, de totale vatlengte, het aantal juncties en de vertakkingsindex.
- Verifieer de output-afbeelding door te bevestigen dat de vasculatuur in geel is omlijnd, het vasculaire skelet in rood wordt weergegeven en de vertakkingspunten zijn gemarkeerd met blauwe stippen.
- Exporteer de kwantitatieve resultaten uit AngioTool.
- Analyseer ten minste drie gezichtsvelden per batch uit drie onafhankelijke batches en compileer de gegevens voor statistische analyse.
- Meting van de aggregaatdiameter
6. Kwantitatieve real-time PCR-analyse van vasculaire organoïden
OPMERKING: Voer alle RNA-isolatie en daaropvolgende procedures uit onder RNase-vrije omstandigheden.
- RNA-extractie
- Verzamel 5–10 mature vasculaire organoïden van dag 15 in een RNase-vrije microcentrifugebuis van 1,5 mL. Verwijder het resterende medium volledig.
OPMERKING: Pool indien nodig meerdere organoïden om voldoende RNA te verkrijgen. - Voeg 350 µL lysisbuffer toe, aangevuld met 1% β-mercaptoethanol.
- Pipetteer de monsters 10–15 keer totdat de organoïden volledig zijn gelyseerd.
- Breng het lysaat over naar een spincolumn voor de eliminatie van genomisch DNA die in een opvangbuis is geplaatst. Centrifugeer 30 s bij 11.000 × g bij kamertemperatuur.
- Gooi de column weg en behoud het doorstroomvolume (flow-through).
- Voeg een gelijk volume 70% ethanol, ongeveer 350 µL, toe aan het doorstroomvolume en meng dit grondig door te pipetteren.
- Breng maximaal 700 µL van het mengsel over naar een RNA-spincolumn die in een opvangbuis is geplaatst. Centrifugeer 30 s bij 11.000 × g en gooi het doorstroomvolume weg.
- Voeg 350 µL wasbuffer 1 toe aan de column. Centrifugeer 30 s bij 11.000 × g en gooi het doorstroomvolume weg.
- Bereid het DNase I-mengsel door per monster 10 µL DNase I te combineren met 70 µL DNase-digestiebuffer.
- Voeg 80 µL van het DNase I-mengsel rechtstreeks toe aan het columnmembraan en incubeer 15 min bij kamertemperatuur.
- Voeg 350 µL wasbuffer 1 toe aan de column. Centrifugeer 30 s bij 11.000 × g en gooi het doorstroomvolume weg.
- Voeg 500 µL wasbuffer 2 toe aan de column. Centrifugeer 30 s bij 11.000 × g en gooi het doorstroomvolume weg.
- Herhaal de wasstap met 500 µL wasbuffer 2.
- Centrifugeer de lege column 2 min bij 11.000 × g om het membraan te drogen.
- Breng de column over naar een schone RNase-vrije microcentrifugebuis van 1,5 mL. Voeg 30–50 µL RNase-vrij water rechtstreeks toe aan het membraan en incubeer 1 min bij kamertemperatuur.
- Centrifugeer 1 min bij 11.000 × g om het RNA te elueren. Bewaar het RNA bij −80 °C tot gebruik.
OPMERKING: Bepaal de RNA-concentratie en -zuiverheid via spectrofotometrie. Gebruik een A260/A280-ratio van 1,8–2,1 als acceptabel bereik.
- Verzamel 5–10 mature vasculaire organoïden van dag 15 in een RNase-vrije microcentrifugebuis van 1,5 mL. Verwijder het resterende medium volledig.
- cDNA-synthese
- Bereid het reverse-transcriptie-reactiemengsel op ijs.
- Combineer 600 ng totaal RNA met 4 µL RT master mix bestaande uit reverse transcriptase, buffer, dNTP's en random primers. Voeg RNase-vrij water toe tot een eindvolume van 20 µL.
- Incubeer de reactie 15 min bij 37 °C, gevolgd door 5 s bij 85 °C.
- Bewaar het resulterende cDNA bij −20 °C tot gebruik.
- Kwantitatieve real-time PCR
- Bereid per reactie 9 µL qPCR master mix door 5 µL 2× SYBR Green master mix, 3 µL RNase-vrij water en 1 µL voorgemengde forward- en reverse-primers van elk 10 µM te combineren.
- Dispenseer 9 µL master mix in elke well van een 96-well qPCR-plaat.
- Voeg 1 µL cDNA toe aan elke well om een eindreactievolume van 10 µL te verkrijgen.
- Sluit de plaat af met optische kleefstrip en centrifugeer 1 min bij 1.000 × g.
- Voer de initiële denaturatie uit bij 95 °C gedurende 30 s.
- Voer 40 amplificatiecycli uit van 5 s bij 95 °C gevolgd door 30 s bij 60 °C.
- Voer een smeltcurve-analyse uit om de specificiteit van het amplicon te bevestigen.
OPMERKING: Analyseer elk monster in dubbelto of triplikaat. - Bereken de relatieve expressie van het targetgen met de 2−ΔΔCt-methode. Normaliseer de Ct-waarden ten opzichte van het housekeeping-gen (bijv. GAPDH) en kalibreer de expressie ten opzichte van niet-gedifferentieerde hiPSC-monsters.
7. Statistische analyse
- Presenteer kwantitatieve gegevens als het gemiddelde ± standaarddeviatie (SD) van ten minste drie onafhankelijke biologische replica's (n ≥ 3) per conditie.
- Behandel elke onafhankelijke batch als één biologische replica voor metingen van aggregaten en organoïdediameters, en bereken het gemiddelde van de 30 individuele structuren die binnen elke batch zijn gemeten om een enkel gemiddelde op batchniveau te verkrijgen.
- Bereken het gemiddelde van de metingen van het vasculaire oppervlak, de pericytbedekking en de vertakkingsindex van meerdere organoïden of velden binnen elke batch om een enkele waarde op batchniveau te verkrijgen, en gebruik deze waarden op batchniveau voor statistische vergelijkingen.
- Vergelijk het geoptimaliseerde protocol met het oorspronkelijke Wimmer-protocol met behulp van een ongepaarde tweezijdige Student's t-toets.
- Definieer statistische significantie als p < 0,05. Geef significantieniveaus aan als p < 0,05, p < 0,01 en p < 0,001, indien van toepassing.
- Voer alle statistische analyses uit met statistische analysesoftware versie 10.
Resultaten
Het hier beschreven geoptimaliseerde protocol maakt de generatie van mature vasculaire organoïden uit hiPSCs mogelijk binnen ongeveer 15 dagen met behulp van een stapsgewijze differentisatiestrategie (Figuur 1A). Kort samengevat werden hiPSC-aggregaten gegenereerd in low-attachment platen aangevuld met 0,25% PVA op een orbitale schudmachine (Dag −1). Mesoderm-inductie werd gestart op Dag 0 met CHIR99021 (12 µM) en BMP-4 (30 ng/mL) gedurende 3 dagen, gevolgd door specificatie van de vasculaire lijn met VEGF-A (100 ng/mL) en forskoline (2 µM) gedurende 2 dagen (Dag 3–5). Op Dag 5 werden de aggregaten ingebed in een collageen I–basale membraanmatrix en gekweekt in N2B27-medium aangevuld met VEGF-A (100 ng/mL), FGF-2 (100 ng/mL) en 15% FBS om vasculaire uitlopers (sprouting) te bevorderen. Op Dag 10 werden individuele vasculaire netwerken uit de gels geïsoleerd en overgebracht naar low-attachment 96-well platen, met één organoïde per well, voor verdere maturatie. Tegen Dag 15 waren mature vasculaire organoïden met een afgeronde, volledig ingekapselde morfologie verkregen (Figuur 1B).
Om de vasculaire identiteit van de gedifferentieerde cellen te bevestigen, werd whole-mount immunofluorescentiekleuring uitgevoerd voor de endotheliale marker CD31, samen met Hoechst-kerntegenkleuring. Confocale microscopie onthulde uitgebreide CD31-positieve endotheliale netwerken die vertakte tubulaire structuren vormden. Driedimensionale reconstructie van z-stack-beelden demonstreerde verder de complexiteit van de vasculaire netwerken binnen de organoïden (Figuur 1C). De differentiatie-efficiëntie werd ook beoordeeld via kwantitatieve real-time PCR-analyse van vasculaire lineage-specifieke genen. De expressie van de endotheliale markers CD31 en CDH5 en de pericytenmarker PDGFR-β was significant verhoogd in organoïden op dag 15 vergeleken met ongedifferentieerde hiPSCs. In contrast was de expressie van de pluripotentiemarkers OCT4, SOX2 en NANOG duidelijk verlaagd, wat succesvolle differentiatie naar de vasculaire lineage bevestigt (Figuur 1D). Co-kleuring voor CD31 en PDGFR-β toonde aan dat PDGFR-β-positieve pericyten nauw geassocieerd waren met en de CD31-positieve endotheliale buisjes omsloten, wat wijst op de vorming van vasculaire structuren met pericytenbedekking (Figuur 1E). Collectief tonen deze resultaten aan dat het geoptimaliseerde protocol betrouwbaar vasculaire organoïden genereert die bestaan uit zowel endotheliale cellen als pericyten binnen een complex driedimensionaal vasculair netwerk.
Om de verbeteringen die door het geoptimaliseerde protocol zijn behaald systematisch te evalueren, werden kwantitatieve morfometrische analyses uitgevoerd om organoïden die zijn gegenereerd met het oorspronkelijke Wimmer-protocol te vergelijken met organoïden die zijn gegenereerd met het geoptimaliseerde protocol over meerdere onafhankelijke batches. Lichtveldmicroscopie onthulde duidelijke morfologische verschillen tussen de twee protocollen gedurende de gehele differentiatie. Waar het oorspronkelijke protocol in meerdere stadia aggregaten en organoïden van heterogene grootten en onregelmatige vormen opleverde, produceerde het geoptimaliseerde protocol vanaf dag 0 consistent uniforme aggregaten met gladde randen, die zich vervolgens tegen dag 15 ontwikkelden tot ronder, uniform geproportioneerde mature vasculaire organoïden (Figuur 2A).
Kwantitatieve analyse van de aggregaatdiameter op dag 0 bevestigde dat het geoptimaliseerde protocol significant uniformere aggregaten opleverde (120,3 ± 5,4 µm, CV = 4,47%; 30 aggregaten gemeten per batch; n = 3 onafhankelijke batches) dan het oorspronkelijke protocol (112,2 ± 34,7 µm, CV = 30,93%; n = 3 onafhankelijke batches; t = 6,159, df = 4, p = 0,004; Figuur 2B). Deze verbetering in uniformiteit bleef behouden tot aan het eindpunt van de differentiatie. Organoïden van dag 15 die waren gegenereerd met het geoptimaliseerde protocol vertoonden een aanzienlijk lagere variabiliteit in grootte (670,8 ± 63,5 µm, CV = 9,47%; 30 organoïden gemeten per batch; n = 3 onafhankelijke batches) vergeleken met die welke waren gegenereerd met het oorspronkelijke protocol (615,4 ± 270,9 µm, CV = 44,0%; n = 3 onafhankelijke batches; t = 8,430, df = 4, p = 0,001; Figuur 2C).
Vervolgens werd de vorming van het vasculaire netwerk beoordeeld door de CD31-positieve endotheliale dekking en de PDGFR-β-positieve pericytdekking te kwantificeren. Over drie onafhankelijke batches produceerde het geoptimaliseerde protocol een significant grotere endotheliale dekking dan het oorspronkelijke protocol (40,1 ± 2,9% vs. 28,0 ± 7,0%; t = 2,856, df = 4, p = 0,05; Figuur 2D). De pericytdekking was eveneens significant groter bij het geoptimaliseerde protocol (36,2 ± 2,5% vs. 17,5 ± 5,2%; t = 6,636, df = 4, p = 0,003) (Figuur 2E). Analyse van de vertakkingsindex met AngioTool toonde verder aan dat organoïden die met het geoptimaliseerde protocol waren gegenereerd, complexere vasculaire netwerken vormden (50,2 ± 3,8 vs. 24,1 ± 6,9 points/mm2; t = 6,163, df = 4, p = 0,004; Figuur 2F). Tot slot werd de algehele efficiëntie van de organoïdevorming geëvalueerd als het percentage initiële aggregaten dat zich tegen dag 15 had ontwikkeld tot mature vasculaire organoïden. Over drie onafhankelijke batches bereikte het geoptimaliseerde protocol een significant hogere vormingsefficiëntie (64,3 ± 3,8%; n = 3) dan het oorspronkelijke protocol (41,3 ± 10,8%; n = 3; t = 3,433, df = 4, p = 0,03), wat overeenkomt met een ongeveer 1,6-voudige toename in de organoïdeproductie (60–67 vs. 29–50 organoïden per 1 × 10⁶ startcellen; Figuur 2G). Het geoptimaliseerde protocol verminderde ook aanzienlijk de batch-tot-batch variabiliteit (SD, 3,8% vs. 10,8%), wat een verbeterde reproduceerbaarheid verder aantoont.
De kwantitatieve resultaten van de oorspronkelijke en geoptimaliseerde protocollen, waaronder de diameter van aggregaten en organoïden, de opbrengst en vormingsefficiëntie van organoïden, het vasculaire areaal, de pericytenbedekking, de vertakkingsindex, het faalpercentage en de variabiliteit tussen batches, zijn samengevat in Tabel 1. De samenstellingen van de media en matrixoplossingen die zijn gebruikt voor het onderhoud van hiPSC's en de differentiatie van vasculaire organoïden zijn opgenomen in Tabel 2, en de formulering van de blokkeringsbuffer die is gebruikt voor whole-mount immunofluorescentiekleuring is opgenomen in Tabel 3. De primersequenties die zijn gebruikt voor kwantitatieve real-time PCR-analyse staan vermeld in Tabel 4. De werkconcentraties en bereidingscondities voor de belangrijkste reagentia die zijn gebruikt tijdens de generatie en karakterisering van vasculaire organoïden zijn opgenomen in Aanvullende Tabel 1.
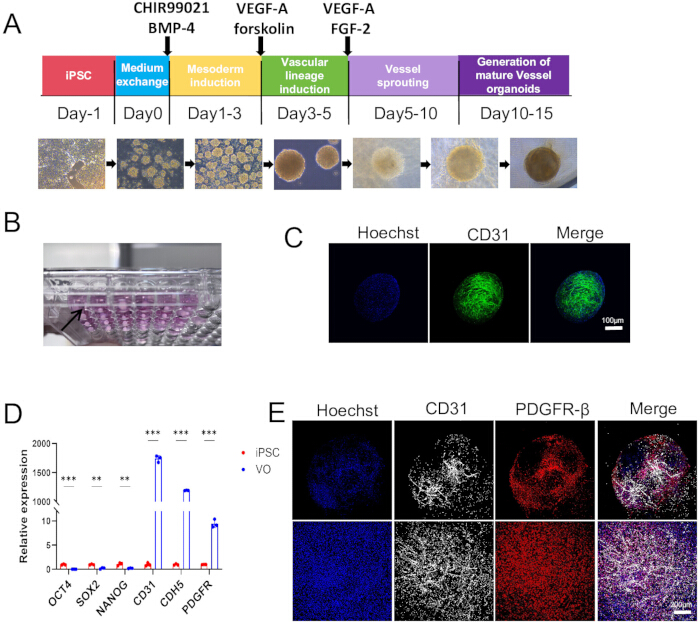
Figuur 1: Generatie en karakterisering van vasculaire organoïden afgeleid van menselijke geïnduceerde pluripotente stamcellen. (A) Schematische weergave van het stapsgewijze differentiatieprotocol voor vasculaire organoïden. hiPSC-aggregaten ondergaan mesoderminductie met CHIR99021 en BMP-4, gevolgd door vasculaire lineage-inductie met VEGF-A en forskoline, vasculaire uitlopers (sprouting) in de aanwezigheid van VEGF-A en FGF-2, en daaropvolgende rijping tot vasculaire organoïden. Representatieve bright-field beelden illustreren morfologische veranderingen tijdens de differentiatie van Dag −1 tot Dag 15. (B) Representatief macroscopisch beeld van rijpe vasculaire organoïden die individueel zijn gekweekt in een 96-well plaat. (C) Representatieve confocale beelden van een vasculaire organoïde van Dag 15, gekleurd voor CD31 (groen) en tegengekleurd met Hoechst (blauw), die het endotheelnetwerk binnen de organoïde tonen. Schaalbalk = 100 µm. (D) Kwantitatieve real-time PCR-analyse van de pluripotentiemarkers OCT4, SOX2 en NANOG en de vasculaire lineage-markers CD31, CDH5 en PDGFR-β in vasculaire organoïden (VO) van Dag 15 vergeleken met ongedifferentieerde hiPSCs. Gegevens worden gepresenteerd als gemiddelde ± SD van drie onafhankelijke experimenten. Statistische significantie werd bepaald met een ongepaarde tweezijdige Student's t-test. (E) Representatieve whole-mount immunofluorescentiebeelden van een vasculaire organoïde van Dag 15, gekleurd voor CD31 (wit), PDGFR-β (rood) en Hoechst (blauw), die de associatie van PDGFR-β-positieve pericyten met CD31-positieve endotheelnetwerken aantonen. Schaalbalk = 200 µm. Klik hier om een grotere versie van deze figuur te bekijken.
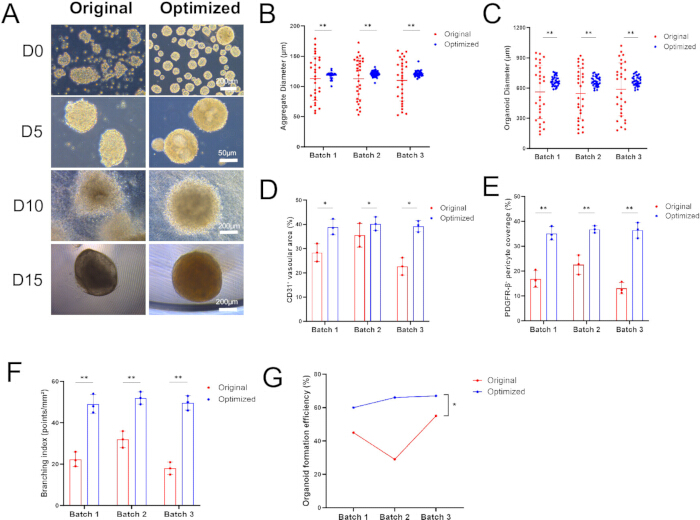
Figuur 2: Kwantitatieve vergelijking van vasculaire organoïden gegenereerd met het oorspronkelijke Wimmer-protocol en het geoptimaliseerde protocol. (A) Representatieve bright-field beelden die de morfologie tonen van aggregaten en vasculaire organoïden gegenereerd met de oorspronkelijke en geoptimaliseerde protocollen op Dag 0 (D0), Dag 5 (D5), Dag 10 (D10) en Dag 15 (D15). Schaalbalken = 200 µm (D0), 50 µm (D5), 200 µm (D10) en 200 µm (D15). (B) Kwantificatie van de aggregaatdiameter op Dag 0 over drie onafhankelijke batches. Per batch en per conditie werden dertig aggregaten gemeten, en de resultaten werden gemiddeld om een gemiddelde op batchniveau te verkrijgen. (C) Kwantificatie van de organoïdediameter op Dag 15 over drie onafhankelijke batches. Per batch en per conditie werden dertig organoïden gemeten, en de metingen werden gemiddeld om een gemiddelde op batchniveau te verkrijgen. (D) Kwantificatie van het CD31-positieve vasculaire areaal in organoïden gegenereerd met de oorspronkelijke en geoptimaliseerde protocollen over drie onafhankelijke batches. (E) Kwantificatie van de PDGFR-β-positieve pericytbedekking over drie onafhankelijke batches. (F) Kwantificatie van de vasculaire vertakkingsindex met behulp van AngioTool over drie onafhankelijke batches. (G) Efficiëntie van organoïdevorming over drie onafhankelijke batches, berekend als het percentage initiële aggregaten dat zich tegen Dag 15 had ontwikkeld tot mature vasculaire organoïden. Gegevens worden gepresenteerd als gemiddelde ± SD van drie onafhankelijke gemiddelden op batchniveau (n = 3 onafhankelijke batches per conditie). Statistische significantie werd bepaald met behulp van een ongepaarde twee-zijdige Student's t-test op de gemiddelden op batchniveau. Klik hier om een grotere versie van deze figuur te bekijken.
Tabel 1: Kwantitatieve vergelijking van de generatie van vasculaire organoïden met behulp van het oorspronkelijke Wimmer-protocol en het geoptimaliseerde protocol. Vergelijking van aggregaatdiameter en groottevariabiliteit op dag 0, organoïddiameter en groottevariabiliteit op dag 15, organoïdopbrengst, efficiëntie van organoïdvorming, CD31-positief vasculair oppervlak, PDGFR-β-positieve pericytbedekking, vasculaire vertakkingsindex, faalpercentage en batch-tot-batch variabiliteit. Waarden worden weergegeven als gemiddelde ± SD indien van toepassing. Metingen van aggregaten en organoïden werden verkregen van 30 structuren per batch over drie onafhankelijke batches per conditie. Metingen van het vasculaire oppervlak, de pericytbedekking en de vertakking werden verkregen van ten minste drie organoïden of velden per batch over drie onafhankelijke batches. Afkortingen: CV = variatiecoëfficiënt; SD = standaarddeviatie. Klik hier om deze tabel te downloaden.
Tabel 2: Bereiding van media en matrixoplossingen voor het onderhoud van hiPSC's en de differentiatie van vasculaire organoïden. Samenstelling en bereiding van chemisch gedefinieerd hPSC-onderhoudmedium (PGM1), basaalmembraanmatrix-coatingsoplossing, 0,02% EDTA-passagewasoplossing, N2B27-basaalmedium, N2B27-compleet differentiatiemedium en collageen I-oplossing gebruikt voor hiPSC-onderhoud, differentiatie, vorming van vasculaire netwerken en organoïdenkweek. Bewaarcondities en bereidingsvereisten worden vermeld waar van toepassing. Afkortingen: DMEM = Dulbecco's modified Eagle medium; EDTA = ethylenediaminetetraazijnzuur; FBS = foetaal runderserum; FGF-2 = fibroblastgroeifactor 2; hiPSC = humane geïnduceerde pluripotente stamcel; NEAA = niet-essentiële aminozuren; PGM1 = Pluripotency Growth Master 1; VEGF-A = vasculair endotheliale groeifactor A. Klik hier om deze tabel te downloaden.
Tabel 3: Bereiding van blokkeerbuffer voor whole-mount immunofluorescentiekleuring van vasculaire organoïden.Samenstelling en bewaarcondities van de blokkeer- en permeabilisatiebuffer gebruikt voor whole-mount immunofluorescentiekleuring. Afkortingen: BSA = bovine serum albumine; FBS = foetaal runderserum; PBS = fosfaatgebufferde zoutoplossing. Klik hier om deze tabel te downloaden.
Tabel 4: Primersequenties gebruikt voor kwantitatieve real-time PCR-analyse. Forward- en reversprimersequenties werden gebruikt om de expressie te beoordelen van de vasculaire lineage-markers CD31, CDH5 en PDGFR-β; de pluripotentiemarkers OCT4, SOX2 en NANOG; en het housekeeping-gen GAPDH. De primersequenties worden gepresenteerd in de 5′→3′ oriëntatie. Afkortingen: qPCR = kwantitatieve real-time PCR. Klik hier om deze tabel te downloaden.
Aanvullende tabel 1: Werkconcentraties en bereidingscondities voor belangrijke reagentia gebruikt bij de generatie en karakterisering van vasculaire organoïden. Werkconcentraties, verdunningen en bereidings- of bewaarcondities voor Y-27632, CHIR99021, BMP-4, VEGF-A, forskoline, FGF-2, PVA, primaire en secundaire antilichaamverdunningen, Hoechst-werkoplossing, PBST-wasoplossing en 4% PFA-fixatief. Deze reagentia worden gebruikt tijdens het herstel en de aggregatie van hiPSC, mesoderm- en vasculaire lijninductie, vasculaire netwerkvorming, whole-mount immunofluorescentiekleuring en fixatie van organoïden. Afkortingen: BMP-4 = bone morphogenetic protein 4; FGF-2 = fibroblast growth factor 2; PFA = paraformaldehyde; PVA = polyvinyl alcohol; PBST = fosfaatgebufferde zoutoplossing bevattende Tween 20; VEGF-A = va Klik hier om deze tabel te downloaden.
Discussie
Het hierin beschreven geoptimaliseerde protocol introduceert verschillende belangrijke verbeteringen aan het systeem voor vasculaire organoïde-differentiatie dat oorspronkelijk is vastgesteld door Wimmer et al.18, met als doel de homogeniteit, reproduceerbaarheid en structurele integriteit van de generatie van vasculaire organoïden te verbeteren. Vergeleken met het oorspronkelijke protocol biedt de geoptimaliseerde methode aanzienlijke verbeteringen op de volgende aspecten. Ten eerste verbetert het optimaliseren van de omstandigheden voor aggregaatvorming de homogeniteit van embryoid bodies aanzienlijk. Het oorspronkelijke protocol maakte gebruik van natuurlijke aggregatie in 6-wells platen met een lage aanhechting om hiPSC-aggregaten te genereren, waarbij 2 × 10⁵ cellen per well werden gezaaid voor de NC8-lijn of 5 × 10⁵ cellen per well voor de H9-lijn, waarbij werd vertrouwd op zwaartekracht om celaggregatie aan te drijven. Deze benadering is sterk afhankelijk van empirische controle van de zaaidichtheid en incubatietijd, wat leidt tot batch-to-batch variabiliteit in aggregaatgrootte. In het geoptimaliseerde protocol, waarbij 6-wells platen met een lage aanhechting voor aggregatie werden behouden, werden drie modificaties geïntroduceerd om de uniformiteit van de aggregaten te verbeteren: (1) het zaaien van 5 × 10⁵ cellen per well om voldoende celaantallen te bieden voor stabiele aggregatie; (2) het toevoegen van 0,25% polyvinylalcohol (PVA) om aspecifieke cel-substraatadhesie te verminderen en homotypische cel-celaggregatie te bevorderen; en (3) het incuberen van de platen op een orbitale schudder bij 37 °C om een uniforme celverdeling en synchrone aggregatie te faciliteren door middel van continue zachte agitatie. Deze modificaties waren geassocieerd met de productie van aggregaten met een regelmatiger sferische morfologie en gladdere randen, wat zorgde voor homogener startmateriaal voor daaropvolgende mesoderm-inductie en vasculaire differentiatie (Figuur 2A,B).
Als aggregaten overmatig klein of fragiel zijn, of geen gladde randen ontwikkelen, controleer dan eerst de celviabiliteit vóór het uitzaaien, aangezien een slechte celgezondheid een veelvoorkomende oorzaak is van inefficiënte aggregatie. Voor hiPSC-lijnen met een gering aggregatievermogen kan de zaaidichtheid worden verhoogd naar 1 × 10⁶ cellen per well, of kan de incubatieperiode worden verlengd van 1 dag naar 2–3 dagen. Omgekeerd zijn overmatig grote aggregaten over het algemeen het resultaat van de fusie van meerdere aggregaten. Verhoog de frequentie van voorzichtig pipetteren tijdens de incubatieperiode om aggregaatfusie te minimaliseren. Het handhaven van een uniforme aggregaatgrootte in deze beginfase is cruciaal, omdat grootteheterogeniteit direct geassocieerd is met variabiliteit in de efficiëntie van de vasculaire differentiatie.
Ten tweede zorgt de optimalisatie van de strategie voor mediumverversing voor een betere instandhouding van de kweekomgeving tijdens de vasculaire differentiatie. Tijdens de fase van vasculaire netwerkvorming behoudt het protocol bij elke mediumverversing één derde van het geconditioneerde medium en wordt de resterende twee derde vervangen door vers N2B27 volledig differentiatiemedium met dezelfde supplementen. In contrast hiermee maakte het oorspronkelijke protocol gebruik van volledige mediumvervanging. Omdat VEGF-A en FGF-2 instabiel zijn onder kweekcondities bij 37 °C, kan volledige mediumvervanging leiden tot aanzienlijke schommelingen in de concentraties van groeifactoren, wat de aanhoudende proliferatie van endotheelcellen en vasculaire uitlopers potentieel kan belemmeren. Het behouden van een deel van het geconditioneerde medium bewaart door cellen uitgescheiden pro-angiogene factoren en extracellulaire componenten, terwijl abrupte veranderingen in de kweekomgeving worden geminimaliseerd. Deze strategie was geassocieerd met een robuustere vorming van het vasculaire netwerk en een grotere pericytbedekking (Figuur 2D,E).
Als de gelmatrix instabiel wordt of inklapt na toevoeging van het medium, controleer dan eerst of het medium grondig is voorverwarmd tot 37 °C, aangezien koud medium gelcontractie kan veroorzaken. Verifieer daarnaast de collagenpolymerisatie door te bevestigen dat de pH van de collagen I-oplossing ongeveer 7,4 is en dat de batches collagen I en basement membrane matrix stabiele gellen vormen. Als de matrix fragiel blijft of niet stolt, gebruik dan een nieuwe batch basement membrane matrix of collagen I en incubeer de gel gedurende de volledige 2 h bij 37 °C voordat het medium wordt toegevoegd. Verleng de polymerisatieperiode indien nodig tot maximaal 3 h.
Ten derde verbetert de vereenvoudiging van de isolatie en rijping van vasculaire organoïden de doorvoersnelheid en consistentie. In het oorspronkelijke protocol werden vasculaire netwerken, die tot dag 10 in 12-wells platen waren gekweekt, individueel overgebracht naar 6-wells low-attachment platen voor 1 dag kweek (dag 11), en vervolgens overgebracht naar 96-wells ultra-low-attachment platen voor verdere kweek tot dag 15. Deze twee stappen van plaatoverdracht verhogen de operationele complexiteit en het risico op verlies van organoïden. Het geoptimaliseerde protocol introduceert drie belangrijke vereenvoudigingen: (1) het direct overbrengen van geïsoleerde organoïden naar 96-wells ultra-low-attachment platen, met één organoïde per well, waardoor de tussenliggende kweekstap in de 6-wells plaat wordt geëlimineerd en de handelingen en mechanische schade worden verminderd; (2) het kweken van één organoïde per well om fusie tijdens suspensiekweek te voorkomen en de onafhankelijkheid van elk organoïde te behouden; en (3) het dagelijks verversen van het medium gedurende 5 dagen om een continue toevoer van voedingsstoffen en groeifactoren te waarborgen, waardoor de organoïden kunnen rijpen tot ronde, volledig ingekapselde structuren. Deze modificaties vereenvoudigen de kweek van organoïden, verbeteren de doorvoersnelheid en faciliteren daaropvolgende high-throughput drug-screening toepassingen.
Om verlies van organoïden tijdens de isolatie te minimaliseren, dient men ervoor te zorgen dat de collageen I-basaalmembraanmatrix volledig is losgekomen van de bodem van de well voordat er wordt gesneden. Beweeg een steriele spatel voorzichtig langs de bodem van de well, van de rand naar het centrum, totdat de gehele gel vrij drijft. Gebruik bij het overbrengen van geïsoleerde organoïden een steriele wegwerppipet in plaats van een P1000-pipetpunt om mechanische stress te verminderen en het afschuiven van organoïden te minimaliseren. Indien organoïden fragmenteren tijdens de handelingen, dient de kwaliteit van de differentiatie opnieuw te worden beoordeeld, inclusief de levensvatbaarheid van de startcellen en de activiteit van belangrijke groeifactoren zoals VEGF-A en FGF-2. Als organoïden fuseren tijdens suspensiecultuur, kunnen ze voorzichtig worden gescheiden met twee P200-pipetpunten. Echter is het kweken van individuele organoïden, één per well, vanaf het begin van de maturatiefase de meest effectieve methode om fusie te voorkomen.
Ten vierde vereenvoudigt de unificatie van het kweekmediumsysteem het protocol en vermindert het de variatie tussen batches. Het oorspronkelijke protocol maakte gebruik van N2B27-medium tijdens de mesoderminductie met CHIR99021 en BMP-4 en tijdens de inductie van de vasculaire lijn met VEGF-A en forskoline, maar schakelde over op serumvrij hematopoëtisch celkweekmedium met FBS, VEGF-A en FGF-2 tijdens de vorming van het vasculaire netwerk. In tegenstelling hiermee maakt het geoptimaliseerde protocol gedurende de gehele vorming van het vasculaire netwerk en de daaropvolgende rijping van de organoïden gebruik van N2B27 compleet differentiatiemedium aangevuld met 15% FBS, VEGF-A en FGF-2, waardoor dezelfde N2B27 basale formulering behouden blijft. Deze uniforme strategie vermindert additionele variabelen die gepaard gaan met het wisselen van kweekmedia en vereenvoudigt de bereiding van reagentia. Het gebruik van de gedefinieerde B27- en N2-supplementen in N2B27-medium kan mogelijk ook bijdragen aan een verbeterde consistentie tussen batches, hoewel de relatieve bijdrage van deze modificatie, los van de andere protocolwijzigingen, in de huidige studie niet experimenteel is gescheiden. De effectiviteit van het geoptimaliseerde protocol werd ondersteund door de upregulatie van markers voor de vasculaire lijn en de downregulatie van pluripotentiemarkers in organoïden op dag 15 (Figuur 1D). Daarnaast onthulde whole-mount immunofluorescentiekleuring uitgebreide CD31+ endotheliale netwerken en nauw geassocieerde PDGFR-β+ pericyten, wat de vorming van vasculaire structuren met een laag murale cellen bevestigt (Figuur 1C,E). PDGFR-β is een goed gevestigde marker voor pericyten in humane vasculaire organoïden, zoals aangetoond in eerdere studies21.
Als de vasculaire uitsprouting gering is of wanneer er grote, ongedifferentieerde aggregaten ontstaan zonder endotheelnetwerken, kan een onvoldoende mesoderm-inductie de onderliggende oorzaak zijn. Bevestig dat CHIR99021 en BMP-4 actief zijn en in de juiste concentraties worden gebruikt. Een gebrekkige rekrutering van pericyten, gekenmerkt door schaarse PDGFR-β+ cellen rondom CD31+ endotheelbuisjes, kan wijzen op een suboptimale activiteit van VEGF-A of FGF-2. Het testen van verschillende batches groeifactoren en het functioneel valideren van FBS-batches op hun vermogen om de vorming van vasculaire organoïden te ondersteunen, kan de dekking door murale cellen verbeteren. Om de effectiviteit van de vier bovenstaande methodologische verbeteringen systematisch te valideren, zijn kwantitatieve morfometrische analyses uitgevoerd waarbij het geoptimaliseerde protocol is vergeleken met het oorspronkelijke Wimmer-protocol (Figuur 2; Tabel 1). Bright-field microscopie onthulde duidelijke morfologische verschillen tussen de twee protocollen gedurende de gehele differentiatie. Waar het oorspronkelijke protocol in alle stadia aggregaten en organoïden van heterogene grootte en onregelmatige vorm opleverde, produceerde het geoptimaliseerde protocol vanaf dag 0 consistent uniforme aggregaten met gladde randen. Deze aggregaten ontwikkelden zich vervolgens tegen dag 15 tot ronder en uniformer van grootte mature vasculaire organoïden (Figuur 2A).
Kwantitatieve analyse bevestigde dat het geoptimaliseerde protocol op dag 0 aanzienlijk uniformere aggregaten genereerde (120,3 ± 5,4 µm, CV = 4,47%, n = 3 onafhankelijke batches) dan het oorspronkelijke protocol (112,2 ± 34,7 µm, CV = 30,93%, n = 3 onafhankelijke batches; Figuur 2B). Deze verbetering in uniformiteit bleef behouden tot aan het eindpunt van de differentiatie, aangezien organoïden op dag 15 die met het geoptimaliseerde protocol waren gegenereerd, eveneens een aanzienlijk verminderde groottevariabiliteit vertoonden (Figuur 2C). Deze resultaten suggereren dat de combinatie van PVA-ondersteunde aggregatie met orbitale schudding de heterogeniteit van de aggregaatgrootte vermindert in vergelijking met het oorspronkelijke protocol, wat resulteert in een homogener startmateriaal voor de daaropvolgende mesoderminductie en vasculaire differentiatie. Omdat het geoptimaliseerde protocol echter meerdere gelijktijdige modificaties bevat, is de specifieke bijdrage van elke individuele wijziging aan de waargenomen verbeteringen in de huidige studie niet experimenteel gescheiden.
Het geoptimaliseerde protocol verbeterde ook de vorming van het vasculaire netwerk aanzienlijk, waarbij de CD31+ endotheliale dekking toenam (40.1 ± 2.9% vs. 28.0 ± 7.0%; t = 2.856, df = 4, p = 0.05; Figuur 2D) en de PDGFR-β+ pericytdekking toenam (36.2 ± 2.5% vs. 17.5 ± 5.2%; t = 6.636, df = 4, p = 0.003; Figuur 2E). Analyse van de vertakkingsindex met AngioTool toonde verder aan dat het geoptimaliseerde protocol complexere vasculaire netwerken genereerde (50.2 ± 3.8 vs. 24.1 ± 6.9 points/mm2; t = 6.163, df = 4, p = 0.004; Figuur 2F). Deze verbeteringen kunnen het resultaat zijn van twee complementaire factoren. Ten eerste zorgen homogene aggregaten voor consistentere startcondities voor vasculaire uitlopers. Ten tweede kan het behouden van één derde van het geconditioneerde medium helpen bij het handhaven van toegevoegde pro-angiogene factoren, terwijl cel-gesecreteerde factoren die de migratie van pericyten en de associatie met endotheliale buisjes kunnen ondersteunen, behouden blijven.
Uiteindelijk leverde het geoptimaliseerde protocol een ongeveer 1,6 keer hogere efficiëntie van organoïdevorming op (64,3 ± 3,8% vs. 41,3 ± 10,8%; t = 3,433, df = 4, p = 0,03), wat overeenkomt met 60–67 volwassen organoïden per 1 × 10⁶ startcellen vergeleken met 29–50 organoïden verkregen met het oorspronkelijke protocol (Figuur 2G). Opvallend is dat het geoptimaliseerde protocol de variabiliteit tussen batches aanzienlijk verminderde, met batchgemiddelden variërend van 60,0% tot 67,0% (SD = 3,8%), terwijl het oorspronkelijke protocol een merkbaar grotere variatie tussen batches vertoonde, met batchgemiddelden variërend van 29,0% tot 50,0% (SD = 10,8%).
Collectief ondersteunen de kwantitatieve gegevens gepresenteerd in Figuur 2 en Tabel 1 de systematische verbeteringen die met het geoptimaliseerde protocol zijn bereikt op het gebied van aggregaathomogeniteit, vorming van het vasculaire netwerk, rekrutering van pericyten, vasculaire complexiteit en organoïde-opbrengst. Deze verbeteringen pakken direct de belangrijkste beperkingen van het oorspronkelijke protocol aan met betrekking tot reproduceerbaarheid en schaalbaarheid.
Samenvattend pakt het huidige geoptimaliseerde protocol de belangrijkste beperkingen van de oorspronkelijke methode aan via vier hoofdverbeteringen: optimalisatie van de aggregaatvorming, modificatie van de strategie voor mediumverversing, vereenvoudiging van de workflow voor isolatie en rijping van organoïden, en unification van het kweekmediumsysteem. Gezamenlijk maken deze modificaties de generatie van vasculaire organoïden efficiënter, reproduceerbaarder en schaalbaarder, waardoor een betrouwbaarder in vitro platform ontstaat voor studies naar vasculaire ontwikkeling, ziektemodellering en drugscreening. Desalniettemin blijft het huidige protocol, net als in de oorspronkelijke methode, afhankelijk van componenten van dierlijke oorsprong, waaronder basaalmembraanmatrix en FBS. Toekomstige inspanningen kunnen zich daarom richten op de ontwikkeling van chemisch gedefinieerde synthetische matrices en serumvrije kweeksystemen om het translationele potentieel van dit platform verder te vergroten.
Het is belangrijk op te merken dat het geoptimaliseerde protocol meerdere gelijktijdige modificaties introduceerde — PVA-suppletie, orbitale schudding, behoud van geconditioneerd medium, een gestroomlijnde maturatie-workflow en een uniform kweekmediumsysteem — en de huidige gegevens stellen niet vast welke individuele modificatie verantwoordelijk is voor de waargenomen verbeteringen in aggregaathomogeniteit, endotheelbedekking, pericytenbedekking of organoïde-opbrengst. De huidige studie was ontworpen om het cumulatieve effect van deze optimalisaties als een compleet protocol te evalueren, in plaats van de bijdrage van elk individueel component te ontleden. Toekomstige factoriële of ablatie-experimenten zullen nodig zijn om de specifieke rol van elke modificatie te bepalen en het protocol verder te verfijnen.
Ondanks deze beperkingen vormt het huidige protocol een praktische en reproduceerbare basis voor de generatie van vasculaire organoïden. Verschillende opkomende richtingen binnen het vakgebied van vasculaire organoïden bieden mogelijkheden voor verdere verfijning van het protocol en een uitgebreidere toepassing. Recente vorderingen in synthetische en diervrije hydrogels hebben veelbelovende alternatieven geboden voor basement membrane matrix en collageen I, waarbij dynamische hydrogels een verbetering van de angiogenese en het sturen van de differentiatie van vasculaire organoïden naar arteriolen hebben aangetoond22. Er is ook een robuuste diervrije methode ontwikkeld op basis van enkelvoudige "sitting drop"-culturen om de cellulaire integriteit te behouden en tegelijkertijd de reproduceerbaarheid en compatibiliteit met automatisering te verbeteren23. Single-cell multi-omics studies hebben een ongekende resolutie geboden van de cellulaire heterogeniteit tijdens de ontwikkeling van menselijke bloedvat-organoïden, waarbij cruciale overgangen in celbestemming en toestand zijn onthuld die kunnen dienen als leidraad voor de gerichte optimalisatie van differentiatieprotocollen24. De integratie van microfluïdische platformen heeft de ontwikkeling mogelijk gemaakt van functionele gevasculariseerde organ-on-chips met perfuseerbare capillaire netwerken, waardoor de groei, rijping en functie van organoïden worden verbeterd door intravasculaire perfusie25. Bovendien ontstaan gespecialiseerde vascular organoid-on-chip systemen als veelbelovende platformen voor drugscreening en ziektemodellering, met potentiële toepassingen in de regeneratieve geneeskunde en reconstructieve chirurgie26. Samen met het hier gepresenteerde geoptimaliseerde differentiatieprotocol kunnen deze complementaire benaderingen de translationele toepassing van vasculaire organoïden in ziektemodellering en therapeutische screening versnellen.
Hoewel het huidige protocol is gevalideerd met een enkele iPSC-lijn, wordt de robuustheid van de differentiatieaanpak ondersteund door consistente resultaten over meerdere onafhankelijke batches. Desalniettemin zal evaluatie over aanvullende iPSC- en ESC-lijnen noodzakelijk zijn om de generaliseerbaarheid verder vast te stellen. De geoptimaliseerde condities, in het bijzonder PVA-suppletie, orbitale schudding en het behoud van geconditioneerd medium, zijn ontworpen om fundamentele aspecten van organoïdkweek aan te pakken, waaronder aggregatie-uniformiteit, massatransport en paracriene ondersteuning, en kunnen daarom soortgelijke voordelen bieden over verschillende cellijnachtergronden.
Openbaarmakingen
De auteurs verklaren dat er geen concurrerende financiële belangen zijn.
Dankbetuigingen
Dit werk werd ondersteund door de National Natural Science Foundation of China (NSFC) via het Young Scientists Fund (C) (No. 32200655) en het General Program (No. 32270847). De auteurs danken tevens het Anhui University Public Service Platform voor de ondersteuning.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0.22 μm flessenfilter | Nalgene | FPE204030 | Voor steriele filtratie van media en buffers |
| 15 mL conische buis | SparkJade | GD0001 | Steriel |
| 2 mL microcentrifugebuis | Eppendorf | 22363204 | Steriel |
| 2-Mercaptoethanol (1000×) | Gibco | 21985023 | Gebruik in zuurkast |
| Alexa Fluor 488 AffiniPure F2 fragment ezel anti-konijn IgG (H+L) | Lablead | Y1104 | Secundair antilichaam; verdun 1:300 |
| Alexa Fluor 594 AffiniPure F(ab′)2 fragment ezel anti-geit IgG (H+L) | Lablead | Y1007 | Secundair antilichaam; verdun 1:300 |
| Anti-CD31 antilichaam | Cell Signaling | 3528s | Primair antilichaam; verdun 1:100 in blokkeringsbuffer |
| Anti PDGFR β antilichaam | Zenbio | 347269 | Primair antilichaam; verdun 1:100 in blokkeringsbuffer |
| Automatische celteller | Life Technologies | Countess™ II | Inclusief telkamerdia's |
| B27 supplement (50×) | Gibco | 17504044 | Voor N2B27-medium; ontdooi bij 4ºC, verdeel in aliquoten en bewaar bij −20ºC, voorkom vries-dooi cycli |
| Benchtop centrifuge | Zonkia | SC-3610 | Met swinging-bucket rotor |
| Biologische veiligheidskast (Klasse II) | Thermo Fisher | NA | NA |
| BMP4 | Proteintech | HZ-1045 | Reconstitueer in steriel ddH2O tot 100 ng/μL, verdeel in aliquoten en bewaar bij −20 °C |
| Boeve Serum Albumine (BSA) | Biosharp | 9048-46-8 | Voor blokkeringsbuffer |
| CHIR99021 | MCE | HY-10182 | Bereid 10 mM stock in DMSO, bewaar bij −20ºC gedurende maximaal 1 jaar |
| CO2 incubator | Fisher Scientific | LS-CO150 | 37 ºC, 5% CO2, bevochtigd |
| Confocale imaging schaal | Biosharp | BS-20-GJM | Voor imaging na kleuring |
| Confocale microscoop | LEICA | NA | Uitgerust met 10×, 20×, 63× objectieven en ZEN-software |
| DMEM | Vivacell | C3113-0500 | Voor Matrigel-verdunning en collageen I-oplossing |
| DMEM/F-12, GlutaMAX supplement | Gibco | 10565018 | Voor Matrigel-verdunning en N2B27-medium |
| EDTA (0.5 M, pH 8.0) | Invitrogen | AM9260G | Verdun met PBS tot 0,02% voor passaging |
| Foetaal kalfsserum (FBS) | Gibco | 10270-106 | Voor volledig N2B27-differentiatiemedium (15% eindconcentratie) |
| FGF-2 | Novoprotein | C046 | Bereid 1 mg/mL stock in steriel PBS, verdeel in aliquoten en bewaar bij −20ºC |
| Forskolin | R&D Systems | 1099 | Bereid 10 mM stock in DMSO, bewaar bij −20ºC |
| HEPES (1M) | Gibco | 15630080 | Voor collageen I-oplossing |
| Hoechst | Beyotime | C1071S-4 | Bereid 1 mg/mL stock in gedeïoniseerd water, verdeel in aliquoten en bewaar bij −20ºC |
| Inverteerde microscoop | LEICA | DMIL LED | Routine celobservatie |
| Matrigel (met verminderde groeifactoren) | STEEMA | BM05 | Bewaar bij −20ºC na aliquotering, voorkom vries-dooi cycli; hanteer op ijs |
| MEM niet-essentiële aminozuren oplossing (NEAA, 100×) | Gibco | 11140035 | Voor N2B27-medium |
| N2 supplement (100×) | Gibco | 17502048 | Voor N2B27-medium; bewaar bij −20ºC beschermd tegen licht |
| Neurobasal medium | Gibco | 21103049 | Voor N2B27-medium |
| Nuclease-vrij water (DNase/RNase-vrij) | Lablead | Doo55WJ | Voor RNA/cDNA-preparatie en qPCR |
| Orbital shaker | Joan Lab | NA | Voor wasstappen |
| Paraformaldehyde (4% oplossing) | Servicebio | G1101 | Verdun met PBS tot 4% voor fixatie; gebruik in zuurkast |
| Penicilline-streptomycine (100×) | Gibco | 15140122 | Voor N2B27-medium |
| PGM1 medium | Cellapy | A1517001 | hiPSC-expansiemedium; bewaar bij 4ºC beschermd tegen licht, stabiel gedurende 2 weken |
| PGM1 supplement (25×) | Cellapy | A1517101 | Voor gebruik met PGM1 basaal medium |
| Polyvinylalcohol (PVA) | Sigma-Aldrich | P8136 | Los op in PGM1 op 0,25% (w/v) om aggregatie te bevorderen |
| PureCol (Bove Type I Collageen, 3 mg/mL) | Advanced BioMatrix | 5005 | Voor collageen I-Matrigel mengsel; test batch op polymerisatiecapaciteit |
| qPCR thermocycler | Thermo Fisher | StepOnePlus™ | Met smeltcurve-mogelijkheid; voor real-time PCR detectie |
| Reverse Transcriptie Kit | Accurate Biology | AG11706 | Voor cDNA-synthese uit totaal RNA; bevat RT-mastermix met reverse transcriptase, buffer, dNTP's en random primers |
| RNA-extractiekit | Yeasen | 19221ES50 | Voor isolatie van totaal RNA uit vasculaire organoïden; bevat gDNA-eliminatiekolommen en RNase-vrije DNase I |
| Natriumbicarbonaat (7,5%) | Gibco | 25080094 | Voor collageen I-oplossing |
| Natriumdeoxycholaat | Sigma-Aldrich | D6750 | Bereid 1% (w/v) oplossing in gedeïoniseerd water voor blokkeringsbuffer |
| Natriumhydroxide (1,0 N) | Sigma-Aldrich | S2770 | Voor pH-aanpassing van collageen I-oplossing |
| Steriele wegwerppipetten (10 mL) | Bkmamlab | 110205007 | Individueel verpakt, steriel |
| Steriele filterpipetpunten (1000, 200, 20 μL) | Biozym | VT0270/VT0250/VT0220 | Steriel, met filter |
| Steriele naald (30 G) | NA | NA | Voor dissectie van vasculaire netwerken |
| Steriele spatel (rond uiteinde) | Fisher Scientific | 21-401-5 | Roestvrij staal |
| SYBR Green Master Mix | Accurate Biology | AG11733 | 2× concentratie voor qPCR; bevat hot-start DNA-polymerase, buffer, dNTP's en SYBR Green-kleurstof |
| Tissue Culture-behandelde 12-wells plaat | BD Falcon | 353043 | Voor gel-embedding en vasculaire netwerkcultuur |
| Tissue Culture-behandelde 6-wells plaat | Eppendorf | 30720113 | Standaard TC-behandeld |
| Triton X-100 | Sigma-Aldrich | T9084 | Voor blokkeringsbuffer |
| Trypaanblauw (0,4%) | Thermo Fisher | 15250061 | Voor celtelling |
| Tween 20 | Sigma-Aldrich | P7949 | Voor 0,05% PBS-T wasoplossing |
| Ultra-Low Attachment 6-wells plaat | Corning | 3471 | Voor aggregaatvorming en differentiatie |
| Ultra-Low Attachment ronde bodem 96-wells plaat | Beyotime | FULA962-6pcs | Voor suspensiecultuur van vasculaire organoïden |
| VEGF-A | Proteintech | HZ-1038 | Bereid 1 mg/mL stock in steriel PBS, verdeel in aliquoten en bewaar bij −20ºC |
| Waterbad | Blue pard | HWS-24 | 37ºC |
| Y-27632 | MCE | HY-10071 | Bereid 10 mM stock in steriel PBS of DMSO, bewaar bij −20ºC; werkconcentraties: 5 μM (ontdooien), 50 μM (aggregaatvorming) |
Referenties
- Lancaster MA, Knoblich JA. Organogenesis in a dish: modeling development and disease using organoid technologies. Science. 2014;345:1247125.
- Clevers H. Modeling development and disease with organoids. Cell. 2016;165:1586-1597.
- Spence JR, et al. Directed differentiation of human pluripotent stem cells into intestinal tissue in vitro. Nature. 2011;470:105-109.
- Lancaster MA, et al. Cerebral organoids model human brain development and microcephaly. Nature. 2013;501:373-379.
- Quadrato G, et al. Cell diversity and network dynamics in photosensitive human brain organoids. Nature. 2017;545:48-53.
- Takasato M, et al. Kidney organoids from human iPS cells contain multiple lineages and model human nephrogenesis. Nature. 2015;526:564-568.
- Takebe T, et al. Vascularized and functional human liver from an iPSC-derived organ bud transplant. Nature. 2013;499:481-484.
- Huch M, et al. Long-term culture of genome-stable bipotent stem cells from adult human liver. Cell. 2015;160:299-312.
- Nakano T, et al. Self-formation of optic cups and storable stratified neural retina from human ESCs. Cell Stem Cell. 2012;10:771-785.
- Mansour AA, et al. An in vivo model of functional and vascularized human brain organoids. Nat Biotechnol. 2018;36:432-441.
- Ham O, et al. Blood vessel formation in cerebral organoids formed from human embryonic stem cells. Biochem Biophys Res Commun. 2020;521:84-90.
- Sun XY, et al. Generation of vascularized brain organoids to study neurovascular interactions. eLife. 2022;11:e76707.
- Grebenyuk S, Ranga A. Engineering organoid vascularization. Front Bioeng Biotechnol. 2019;7:39.
- Parikh M, Pierce GN. Considerations for choosing an optimal animal model of cardiovascular disease. Can J Physiol Pharmacol. 2024;102:75-85.
- Krug A, et al. Three-dimensional spheroid models for cardiovascular biology and pathology. Mechanobiol Med. 2025;3:100144.
- Carmeliet P. Angiogenesis in health and disease. Nat Med. 2003;9:653-660.
- Wimmer RA, et al. Human blood vessel organoids as a model of diabetic vasculopathy. Nature. 2019;565:505-510.
- Wimmer RA, et al. Generation of blood vessel organoids from human pluripotent stem cells. Nat Protoc. 2019;14:3082-3100.
- Naderi-Meshkin H, et al. Vascular organoids: unveiling advantages, applications, challenges, and disease modelling strategies. Stem Cell Res Ther. 2023;14:292.
- Xu C, et al. Vascular organoid generation from human-induced pluripotent stem cells. J Vis Exp. 2024;214:e67125.
- Frenz-Wiessner S, et al. Generation of complex bone marrow organoids from human induced pluripotent stem cells. Nat Methods. 2024;21:868-881.
- Sun D, et al. Matrix viscoelasticity controls differentiation of human blood vessel organoids into arterioles and promotes neovascularization in myocardial infarction. Adv Mater. 2025;37:e2410802.
- Hoffmann A, et al. Animal-origin-free method for generating blood vessel organoids. Sci Rep. 2026;16:12096.
- Nikolova MT, et al. Fate and state transitions during human blood vessel organoid development. Cell. 2025;188:3329-3348.e31.
- Quintard C, et al. A microfluidic platform integrating functional vascularized organoids-on-chip. Nat Commun. 2024;15:1452.
- Sun L, Wang P, Lin X, Qiu Y. Microfluidic vascular organoids-on-chips: a promising platform for advancing plastic and reconstructive surgery. Chinese Journal of Plastic and Reconstructive Surgery. 2025.