Deze studie combineert gepaarde menselijke weefsels, twee cellijnen van plaveiselcelcarcinoom van de long, assays voor RNA- en proteïnestabiliteit, genetische rescue-experimenten en een xenograft-model met FOXD1-knockdown om de METTL3-geassocieerde regulatie van FOXD1 te onderzoeken en een reproduceerbaar kader te bieden voor het bestuderen van post-transcriptionele oncogene mechanismen.
Onderzoeksartikel
METTL3-geassocieerde regulatie van FOXD1 bevordert de progressie van plaveiselcelcarcinoom van de long: een multimodel experimentele benadering
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Longplaveiselcelcarcinoom (LUSC) heeft beperkte behandelingsopties, wat onderzoek naar moleculaire pathways die de groei van tumorcellen ondersteunen, motiveert. De expressie van Forkhead box D1 (FOXD1) werd beoordeeld met behulp van gene expression profiling interactive analysis (GEPIA), kwantitatieve reverse-transcriptie polymerasekettingreactie (qRT-PCR), western blotting en immunohistochemie in gepaarde weefsels en cellijnen. FOXD1 of methyltransferase-like 3 (METTL3) werd gedepleteerd in LUSC-cellen, waarna de celviabiliteit, apoptose, migratie, globale N6-methyladenosine (m6A), transcriptstabiliteit en proteïnestabiliteit werden geëvalueerd. Een FOXD1-knockdown xenograft-model testte de in vivo rol van FOXD1; METTL3 werd bij de dieren niet gemanipuleerd.
De expressie van FOXD1 was hoger in LUSC-weefsels en -cellen dan in de overeenkomstige controles. FOXD1-knockdown verminderde de levensvatbaarheid en migratie, verhoogde apoptose en onderdrukte de groei van xenografts. METTL3-expressie correleerde met FOXD1 in gepaarde LUSC-weefsels. In gekweekte cellen verlaagde METTL3-knockdown de globale m6A- en FOXD1-hoeveelheid, terwijl FOXD1-re-expressie de bijbehorende fenotypen gedeeltelijk herstelde. Actinomycine D-, cycloheximide- en MG132-assays waren consistent met METTL3-gerelateerde veranderingen in de stabiliteit van FOXD1-RNA en -eiwit.
Deze gegevens ondersteunen een functionele associatie tussen METTL3 en FOXD1 in LUSC-cellen. In vivo onderdrukte knockdown van FOXD1 de groei van xenografts en verminderde de Ki-67-kleuring, waarmee FOXD1 is vastgesteld als een promotor van xenograft-groei. Directe METTL3–FOXD1-binding, site-specifieke m6A-modificatie, reader-afhankelijkheid en in vivo validatie van het volledige METTL3–FOXD1-pad moeten nog worden vastgesteld.
Inleiding
Longkanker blijft wereldwijd een leidende oorzaak van kankersterfte1,2. Longplaveiselcelcarcinoom (LUSC), een belangrijk histologisch subtype van niet-kleincellig longcarcinoom (NSCLC), manifesteert zich vaak pas wanneer curatieve lokale behandeling niet langer haalbaar is3,4. De systemische behandeling is verbeterd, maar veel patiënten hebben nog steeds een slechte prognose5. Het definiëren van moleculaire programma's die de groei van LUSC in stand houden, kan daarom leiden tot testbare biomarkers en therapeutische hypothesen.
Forkhead box D1 (FOXD1) is een transcriptiefactor die betrokken is bij colorectale, hoofd-halze-, maag-, orale plaveiselcel- en borstkankers6,7,8,9,10. Bij NSCLC is de expressie van FOXD1 geassocieerd met een ongunstige uitkomst en met experimentele celgroei en metastase11,12. MicroRNA-30a-5p onderdrukt daarnaast de proliferatie en migratie van LUSC-cellen door FOXD1 te targeten13. Deze observaties identificeren FOXD1 als een plausibele regulator van LUSC, maar ze leggen niet vast hoe de expressie ervan in deze ziekte in stand wordt gehouden.
N6-methyladenosine (m6A) is een omkeerbare RNA-modificatie die wordt geplaatst, verwijderd en geïnterpreteerd door writer-, eraser- en reader-eiwitten. Dit regulatiesysteem kan de RNA-verwerking, translatie en afbraak beïnvloeden, en verstoring hiervan is gekoppeld aan maligne fenotypen en respons op behandeling14,15,16,17. Methyltransferase-like 3 (METTL3) is een katalytische component van het m6A-writercomplex; een correlatie tussen METTL3 en FOXD1 alleen kan echter geen directe methylering of reader-gemedieerde regulatie aantonen.
Wij stelden de hypothese op dat METTL3 de progressie van LUSC bevordert door de expressie van FOXD1 in stand te houden via m6A-geassocieerde post-transcriptionele regulatie. Door de integratie van gepaarde klinische monsters, twee tumorcellijnen, loss-of-function- en rescue-assays, analyses van transcript- en proteïnestabiliteit en een FOXD1-knockdown xenograftmodel, biedt deze studie een functioneel kader voor het onderzoeken van de METTL3–FOXD1-relatie, waarbij onderscheid wordt gemaakt tussen associatie en directe site-specifieke methylering.
Protocol
De verzameling van menselijk weefsel werd uitgevoerd in overeenstemming met de Verklaring van Helsinki en werd goedgekeurd door de Institutional Review Board van het First Hospital of Jilin University (goedkeuringsnummer 2022-339; 22 juli 2022), waarbij schriftelijke geïnformeerde toestemming werd verkregen van alle deelnemers. Het dierprotocol werd goedgekeurd door de Animal Management Committee van het First Hospital of Jilin University (goedkeuringsnummer 2022-0015; 25 januari 2022) en werd uitgevoerd in overeenstemming met de institutionele richtlijnen voor de zorg voor en het gebruik van dieren.
Proefpersonen
Gearchiveerde specimens bestonden uit 12 gepaarde primaire LUSC- en aangrenzende niet-tumorweefsels, verzameld van patiënten die tussen januari 2019 en december 2020 een operatie ondergingen. In aanmerking komende patiënten hadden pathologisch bevestigde primaire LUSC, geen gedocumenteerde metastasen en hadden in de voorafgaande 6 maanden geen LUSC-gerichte behandeling ondergaan. De gevallen werden geselecteerd met een randomisatietabel en omvatte zeven mannen en vijf vrouwen in de leeftijd van 30–65 jaar. Van alle deelnemers is schriftelijke geïnformeerde toestemming verkregen.
Cellijnen
Menselijke bronchiale epitheelcellen BEAS-2B (RRID: CVCL_0168), LUSC SK-MES-1 (RRID: CVCL_0630) en NCI-H226-cellen (RRID: CVCL_1544) werden verkregen van de Cell Bank of the Chinese Academy of Sciences. Cellen werden gekweekt in Dulbecco's modified Eagle medium met 10% foetaal runderserum en 1% penicilline-streptomycine bij 37 °C in 5% CO2. Commerciële identificatienummers zijn samengevoegd in de bijbehorende Tabel met materialen.
Screening en rescue met small interfering RNA
Drie individuele small interfering RNA's gericht tegen FOXD1 of METTL3 werden gescreend in SK-MES-1 en NCI-H226 cellen. De knockdown werd 48 u na transfectie beoordeeld via kwantitatieve reverse transcriptie-PCR (qRT-PCR) en western blotting. FOXD1 siRNA-1 werd gebruikt voor downstream functionele assays van FOXD1, omdat dit de grootste reductie veroorzaakte in beide cellijnen. Voor downstream METTL3 experimenten werd het geselecteerde si-METTL3 reagens uit de screening gebruikt. Het gearchiveerde verslag identificeert geen SmartPool en bewaart geen sequentie of leveranciersidentificatie die met zekerheid kan worden toegewezen. Voor rescue-experimenten kregen de cellen het geselecteerde si-METTL3 reagens, het FOXD1-overexpressieconstruct, of beide; de expressie en cellulaire fenotypen werden 48 u na transfectie beoordeeld.
RNA-isolatie en qRT-PCR
Totaal RNA werd geïsoleerd uit weefsels of cellen met een fenol-guanidiniumreagens en reverse getranscribeerd met behulp van een commerciële reverse-transcriptiekit. qRT-PCR werd uitgevoerd met een TB Green master mix op een real-time PCR-systeem (RRID: SCR_018051). De primersequenties staan vermeld in Tabel 1. De relatieve expressie werd genormaliseerd ten opzichte van glyceraldehyde 3-fosfaatdehydrogenase (GAPDH). De reactiesamenstelling en thermische cycli volgden het protocol van de fabrikant voor de vermelde master mix.
Western blotting
Weefsels of cellen werden gelyseerd in radioimmunoprecipitatie-assay (RIPA) buffer met protease-remmers. Equivalente proteinemengsels werden gescheiden middels natriumdodecylsulfaat-polyacrylamidegelelektroforese (SDS-PAGE) en overgebracht op polyvinylideenfluoride (PVDF) membranen. Membranen werden overnacht bij 4 °C geïncubeerd met antilichamen tegen FOXD1 (1:1.000), METTL3 (1:1.000; RRID: AB_2142033) of GAPDH (1:2.000; RRID: AB_10622025), gevolgd door mierikswortelperoxidase-geconjugeerd anti-konijn immunoglobuline G gedurende 1 h bij kamertemperatuur. Signalen werden ontwikkeld via verbeterde chemiluminescentie, waarbij GAPDH als ladingscontrole diende. De Tabel met Materialen identificeert de commerciële primaire antilichamen en vermeldt het secundaire reagens als een anti-konijn immunoglobuline G detectieantilichaam.
Cellevensvatbaarheid en apoptose
Voor levensvatbaarheidsmetingen werden controle- en getransfecteerde LUSC-cellen uitgezaaid in 96-wells platen met 2.000 cellen per well. Met intervallen van 12 u werd 10 µL cell counting kit-8 reagens per well toegevoegd, werden de platen 1 u geïncubeerd bij 37 °C, en werd de absorbentie gemeten bij 450 nm. Voor apoptoseanalyse werden 1 × 10⁵ cellen per well uitgezaaid in 6-wells platen en werden deze 48 u na transfectie geanalyseerd. De geoogste cellen werden verwerkt volgens de instructies van de Annexin V–fluoresceïne-isothiocyanaat (FITC)/propidiumjodide (PI) kit, geresuspendeerd in 100 µL bindingsbuffer, gedurende 30 min bij kamertemperatuur in het donker gekleurd met 5 µL van elk reagens, en binnen 4 u geanalyseerd via flowcytometrie.
Transwell-migratie
Getransfecteerde LUSC-cellen werden in serumvrij medium in de bovenste transwell-kamer geplaatst; de onderste kamer bevatte 500 µL medium aangevuld met 10% foetaal runderserum. Na 24 u werden de gemigreerde cellen gefixeerd met 4% paraformaldehyde en gedurende 10 min gekleurd met kristalviolet. Niet-gemigreerde cellen op het oppervlak van het bovenste membraan werden verwijderd met een wattenstaafje. De gemigreerde cellen werden gefotografeerd met een microscoop onder identieke acquisitie-instellingen en gekwantificeerd met ImageJ (RRID: SCR_003070).
m6A-methyleringsmodificatie
De globale m6A-hoeveelheid werd gemeten met een colorimetrische RNA-methyleringsanalyse. Na RNA-extractie en kwaliteitsbeoordeling werden 200 ng RNA per analysewelt toegevoegd. Capture-antilichamen (50 µL) werden gedurende 60 min bij kamertemperatuur toegevoegd. De wells werden drie keer gewassen, gedurende 30 min geïncubeerd met 50 µL detectie-antilichamen, vier keer gewassen en gedurende 30 min geïncubeerd met een signaalversterkingsoplossing. De absorptie werd gemeten bij 450 nm. Alle stappen werden uitgevoerd volgens de bijgesloten handleiding van de kit.
Detectie van mRNA-stabiliteit
LUSC-cellen werden uitgezaaid in 6-wells platen en getransfecteerd met negatieve-controle klein interfererend RNA (si-NC) of METTL3-targeterend klein interfererend RNA (si-METTL3). Na 48 u werd actinomycine D toegevoegd tot een concentratie van 5 µg/mL om de transcriptie te stoppen. Cellen werden geoogst bij 0 u, 2 u, 4 u en 6 u, totaal RNA werd geïsoleerd en de abundantie van het FOXD1-transcript werd gemeten via qRT-PCR.
Cycloheximide (CHX) en MG132-assays
Voor elke assay van het inhibitor-eindpunt werden onbehandelde vector-controlecellen, inhibitor-behandelde vector-controlecellen en inhibitor-behandelde METTL3-overexpresserende cellen vergeleken. MG132 werd gebruikt in een concentratie van 10 µM en CHX in 20 µM; lysaten werden na 12 h verzameld voor western blotting. Voor de CHX-tijdscursus werden si-NC- of si-METTL3-getransfecteerde cellen behandeld met 20 µM CHX en verzameld op 0 h, 3 h, 6 h en 9 h. De abundantie van het FOXD1-eiwit werd gemeten via western blotting.
In vivo experimenten
Vijf weken oude athymische BALB/c nude muizen werden toegewezen aan negatieve-controle- en FOXD1-knockdown SK-MES-1 groepen (n = 8 muizen per groep). Elke muis kreeg een subcutane injectie van ongeveer 8 × 10⁶ cellen. De tumormonitoring begon 1 week na implantatie; de tumorgrootte werd elke 4 dagen gedurende 20 opeenvolgende dagen geregistreerd. De muizen werden op dag 27 na inoculatie geëuthanaseerd volgens goedgekeurde institutionele protocollen, direct na de laatste meting, waarna de tumoren werden uitgesneden, gewogen en gefotografeerd. Stabiele FOXD1-knockdown en bijbehorende negatieve-controle SK-MES-1 celpopulaties werden gebruikt voor de implantatie.
Immunochemie
Uitgesneden tumoren werden in paraffine ingebed en in coupes van 4–5 µm gesneden. De coupes werden gedeparaffineerd, gerehydrateerd, een nacht bij 4 °C geïncubeerd met het primaire antilichaam en vervolgens gedurende 30 min geïncubeerd met het bijbehorende secundaire antilichaam. Antigeen-positieve cellen werden gevisualiseerd met een diaminobenzidine-substraat. FOXD1 en Ki-67 werden geëvalueerd in de xenografts, waarbij gepaarde coupes in dezelfde kleuringsbatch werden verwerkt en werden afgebeeld onder identieke acquisitie-instellingen.
Statistische analyse
Analyses werden uitgevoerd met GraphPad Prism versie 8 (RRID: SCR_002798) en R (RRID: SCR_001905). Voor vergelijkingen tussen twee groepen werd de Student's t-toets gebruikt, en voor vergelijkingen met meer dan twee groepen werd variantieanalyse gebruikt. Voor gepaarde analyses van menselijk weefsel werden 12 patiëntparen gebruikt; in vitro samenvattingen vertegenwoordigen drie onafhankelijke biologische experimenten; voor xenograft-analyses werden acht muizen per groep gebruikt. Technische replica's werden niet behandeld als onafhankelijke waarnemingen. Gegevens worden gepresenteerd als gemiddelde ± standaarddeviatie. Een tweezijdige P < 0,05 werd beschouwd als statistisch significant.
Resultaten
FOXD1-expressie is verhoogd in menselijke LUSC-weefsels
Een Gene Expression Profiling Interactive Analysis (GEPIA) query toonde een hogere abundantie van FOXD1-transcripten in LUSC dan in normale longmonsters, terwijl de vergelijking met longadenocarcinoom geen significantie bereikte (Figuur 1A). Analyse van 12 gepaarde LUSC- en aangrenzende niet-tumorweefsels leverde via qRT-PCR en western blotting dezelfde trend in verandering op (Figuur 1B,C). Immunohistochemische kleuring toonde eveneens een sterker FOXD1-signaal in tumorsecties dan in het gepaarde aangrenzende weefsel (Figuur 1D).
FOXD1-knockdown vermindert de levensvatbaarheid en migratie en verhoogt apoptose in LUSC-cellen
De abundantie van FOXD1-transcripten was groter in SK-MES-1- en NCI-H226-cellen dan in BEAS-2B-cellen (Figuur 2A). Er werden drie small interfering RNA's gericht tegen FOXD1 gescreend; siRNA-1 veroorzaakte de grootste reductie gedetecteerd via qRT-PCR en western blotting en werd geselecteerd voor daaropvolgende assays (Figuur 2B,C). Ten opzichte van de negatieve controle verminderde FOXD1-knockdown het Cell Counting Kit-8-signaal (Figuur 2D), verhoogde het aantal Annexine V-positieve cellen (Figuur 2E) en verlaagde het de Transwell-migratie (Figuur 2F) in beide LUSC-cellijnen. Er is één geselecteerde reagent gebruikt, waardoor de functionele resultaten geen sequentie-onafhankelijke uitsluiting van off-target effecten vormen.
METTL3-expressie correleert met FOXD1 in LUSC-monsters
m6A-methylering is een dynamische en reversibele chemische modificatie die veel voorkomt in eukaryoten, wordt gereguleerd door methyltransferases en demethylases, en wordt herkend en verwerkt door m6A-bindende eiwitten18. Het globale m6A-signaal was hoger in de 12 LUSC-weefsels dan in de gepaarde aangrenzende weefsels en was ook hoger in beide LUSC-cellijnen dan in BEAS-2B-cellen (Figuur 3A). Transcripten die coderen voor METTL3, METTL14, WTAP en RBM15 waren verhoogd in de gepaarde tumorstalen (Figuur 3B). In zowel de GEPIA-data als de set van 12 tumoren vertoonde FOXD1 de duidelijkste positieve associatie met METTL3; de associatie met RBM15 was zwakker (Figuur 3C,D). Western blotting toonde verder een hogere METTL3-abundantie aan in tumorweefsels (Figuur 3E). Deze analyses stellen co-variatie vast, geen directe regulatie.
METTL3-knockdown verandert de abundantie van FOXD1 en de fenotypen van LUSC-cellen
Drie small interfering RNA's die gericht zijn op METTL3 werden gescreend in SK-MES-1 en NCI-H226 cellen via qRT-PCR en western blotting (Figuur 4A,B). METTL3 knockdown verlaagde het globale m6A-signaal (Figuur 4C). Overexpressie van FOXD1 verhoogde FOXD1 zonder METTL3 te verhogen (Figuur 4D), en het rescue-experiment met vier groepen bevestigde een lagere abundantie van FOXD1 na METTL3 knockdown en de herstel hiervan door het FOXD1-construct (Figuur 4E,F). METTL3 knockdown verminderde de viabiliteit en migratie en verhoogde de apoptose; re-expressie van FOXD1 maakte deze veranderingen gedeeltelijk ongedaan (Figuur 4G–I). De rescue-data zijn hiermee consistent met de stelling dat FOXD1 stroomafwaarts van METTL3 werkt in gekweekte cellen.
Perturbatie van METTL3 is geassocieerd met de stabiliteit van FOXD1 RNA en eiwit
Toenemend bewijs suggereert dat m6A mRNA-modificatie verschillende aspecten van de mRNA-cyclus moduleert, waaronder pre-mRNA splicing, translatie, nucleocytoplasmatische export, afbraak en splicing19,20. SRAMP identificeerde kandidaat m6A-motieven in FOXD1 RNA, en m6A2Target vermeldde METTL3 als een voorspelde FOXD1-geassocieerde writer in H1299-cellen (Figuur 5A,B). Deze database-outputs zijn hypothese-genererend en tonen geen binding of site-specifieke methylering aan in LUSC-cellen. Na transcriptionele blokkade met actinomycine D nam FOXD1 RNA sneller af na METTL3-knockdown dan in controlecellen (Figuur 5C). De abundantie van FOXD1 was hoger in met MG132 behandelde METTL3-overexpressiecellen dan in met MG132 behandelde vectorcontroles, terwijl dit patroon niet werd waargenomen na CHX-behandeling (Figuur 5D,E). De CHX-tijdreeks liet een sneller verlies van FOXD1-eiwit zien na METTL3-knockdown (Figuur 5F). Collectief zijn deze assays consistent met METTL3-geassocieerde veranderingen in de stabiliteit van FOXD1 RNA en -eiwit, maar ze identificeren de gemodificeerde adenosine niet, tonen geen directe binding aan en definiëren geen m6A-reader.
FOXD1 knockdown onderdrukt de groei van LUSC-xenotransplantaten
Om de functie van FOXD1 in vivo te testen, werden controle- en FOXD1-knockdown SK-MES-1 cellen subcutaan geïmplanteerd in naaktmuizen (n = 8 per groep). Vanaf 1 week na implantatie werden de tumoren elke 4 dagen gedurende 20 dagen gemeten en werden ze verzameld op dag 27 na inoculatie. De uitgesneden tumoren waren kleiner in de FOXD1-knockdown groep (Figuur 6A), hun groeicurves stegen langzamer (Figuur 6B) en hun uiteindelijke gewichten waren lager (Figuur 6C). De FOXD1- en Ki-67-kleuring was ook verminderd in de knockdown-tumoren (Figuur 6D). Deze experimenten evalueren uitsluitend de knockdown van FOXD1; ze testen de METTL3-inhibitie in vivo niet.
Samengevat was FOXD1 overexpressie aanwezig in weefsels en cellen van plaveiselcelcarcinoom van de long en ondersteunde het proliferatie, migratie en xenograft-groei. METTL3-knockdown verminderde de globale m6A-niveaus, verlaagde de FOXD1-expressie en verslechterde maligne cellulaire fenotypes, terwijl re-expressie van FOXD1 deze effecten gedeeltelijk terugdraaide. De stabiliteitsassays ondersteunen METTL3-geassocieerde post-transcriptionele regulatie van FOXD1, maar stellen geen directe site-specifieke methylering of in vivo rescue van het volledige pad vast. Het onderzoeksontwerp is samengevat in Figuur 7.
DATABESCHIKBAARHEID:
Alle in deze studie geanalyseerde gegevens zijn opgenomen in het artikel en de bijbehorende figuren. Geanonimiseerde numerieke gegevens die ten grondslag liggen aan de gerapporteerde samenvattingen zijn op redelijk verzoek verkrijgbaar bij de corresponderende auteur, onderhevig aan institutionele regelgeving en vereisten voor de bescherming van deelnemers. Er zijn geen simulatiebestanden of aangepaste analysecodes gebruikt.
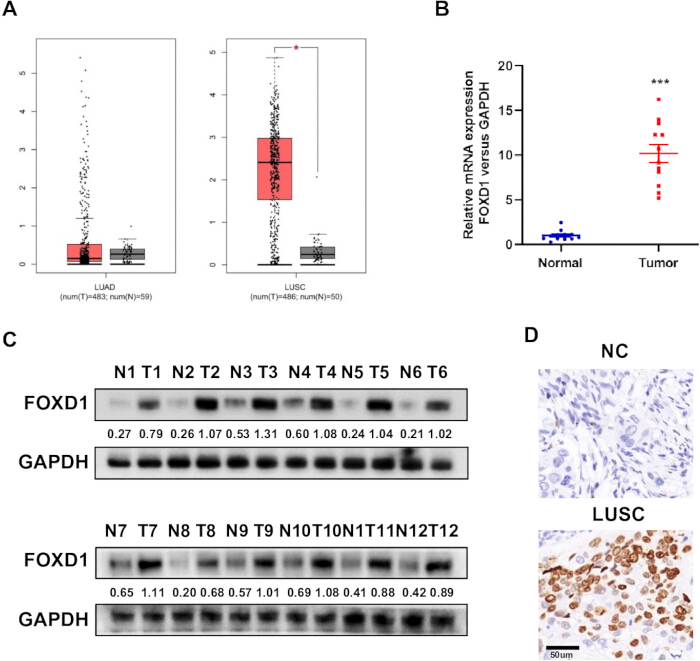
Figuur 1: FOXD1-expressie in menselijke longkankermonsters. (A) GEPIA-vergelijking van de abundantie van FOXD1-transcripten in longadenocarcinoom (LUAD) en longplaveiselcelcarcinoom (LUSC) versus normale longmonsters. (B) Abundantie van FOXD1-transcripten in 12 gepaarde LUSC- en aangrenzende niet-tumorweefsels. (C) Abundantie van FOXD1-eiwit in dezelfde gepaarde weefsels. (D) Representatieve FOXD1-immunohistochemie. Menselijk weefsel n = 12 paren; in vitro-stijl technische herhaling verandert de n op patiëntniveau niet. Schaalbalk in paneel D = 50 µm. ***P < 0,001. Klik hier om een grotere versie van deze figuur te bekijken.
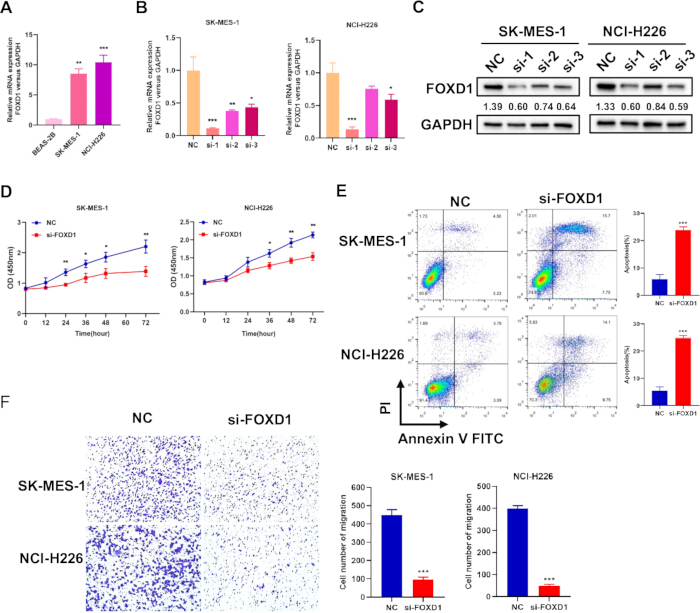
Figuur 2: Effecten van FOXD1 knockdown in SK-MES-1 en NCI-H226 cellen. (A) FOXD1 transcript- abundantie in BEAS-2B, SK-MES-1 en NCI-H226 cellen. (B) qRT-PCR screening van drie FOXD1-gerichte small interfering RNA's 48 u na transfectie. (C) Western-blot screening van dezelfde drie FOXD1-gerichte small interfering RNA's. (D) Cell counting kit-8 assay na FOXD1 knockdown. (E) Annexine V–fluoresceïne-isothiocyanaat/propidiumjodide apoptose-analyse na 48 u. (F) Transwell-migratie gemeten 24 u na het uitplaten van getransfecteerde cellen; de gearchiveerde beelden van het gezichtsveld worden gepresenteerd zonder retrospectieve schaalbalk omdat kalibratiemetadata niet beschikbaar waren. Drie onafhankelijke biologische experimenten zijn uitgevoerd. *P < 0.05; **P < 0.01; ***P < 0.001. Klik hier om een grotere versie van deze figuur te bekijken.
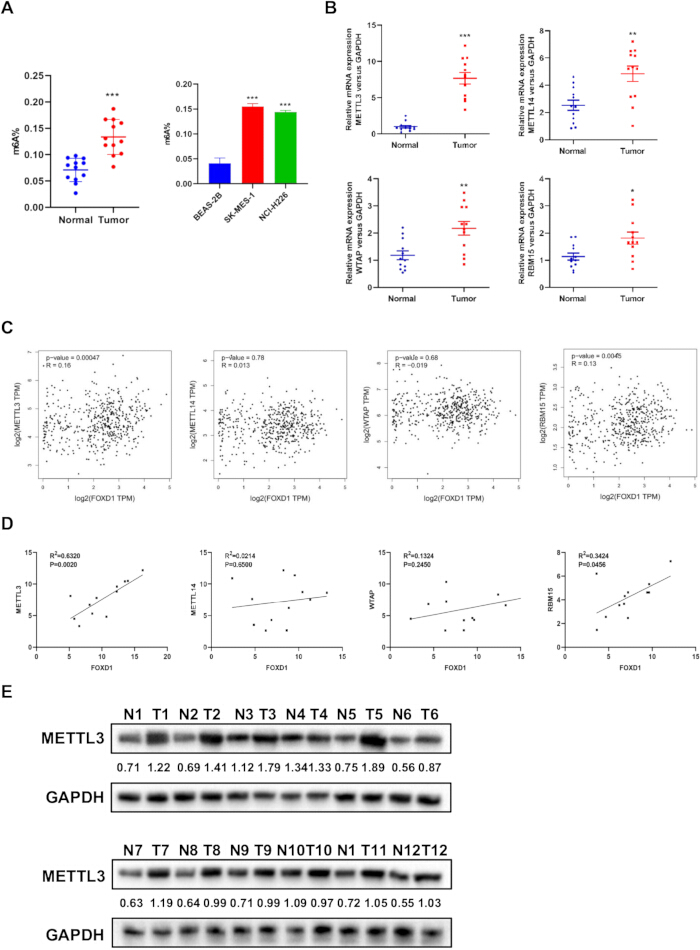
Figuur 3: Globale N6-methyladenosine en de associatie tussen METTL3 en FOXD1. (A) Globaal m6A-signaal in gepaarde weefsels en in BEAS-2B, SK-MES-1 en NCI-H226-cellen. (B) METTL3-, METTL14-, WTAP- en RBM15-transcripten in 12 gepaarde LUSC- en aangrenzende weefsels. (C) GEPIA-correlaties tussen FOXD1 en elke writer. (D) Correlaties tussen FOXD1 en writer-transcripten in 12 LUSC-tumoren. (E) METTL3-eiwit in gepaarde LUSC- en aangrenzende weefsels. Menselijk weefsel n = 12 paren; celassays vertegenwoordigen drie onafhankelijke biologische experimenten. *P < 0.05; **P < 0.01; ***P < 0.001. Klik hier om een grotere versie van deze figuur te bekijken.
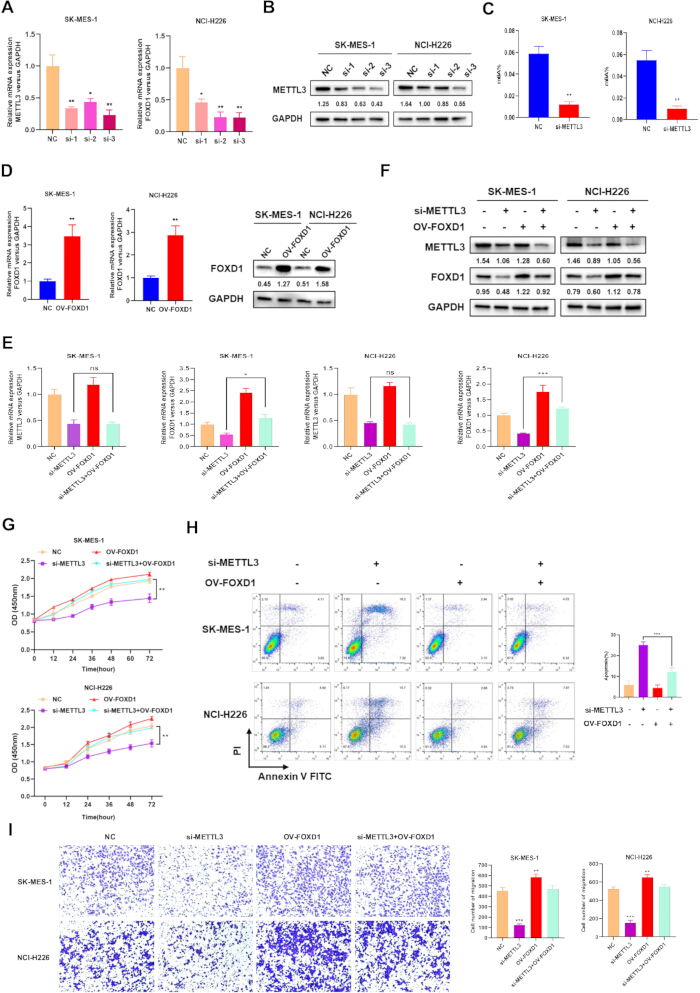
Figuur 4: METTL3-knockdown, FOXD1-rescue en LUSC-cel-fenotypes. (A) qRT-PCR screening van drie kleine interfererende RNA's gericht tegen METTL3, 48 u na transfectie. (B) Western-blot screening van dezelfde drie kleine interfererende RNA's gericht tegen METTL3. (C) Globaal m6A-signaal na METTL3-knockdown. (D) FOXD1-transcript- en eiwitovervloed na FOXD1-overexpressie. (E) METTL3- en FOXD1-transcriptovervloed in controle-, si-METTL3-, ov-FOXD1- en gecombineerde si-METTL3 + ov-FOXD1-condities, gemeten via qRT-PCR. (F) METTL3- en FOXD1-eiwitovervloed in dezelfde rescue-groepen, gemeten via western blotting. (G) Cell Counting Kit-8 assay. (H) Apoptose via flowcytometrie. (I) Transwell-migratie. Er zijn drie onafhankelijke biologische experimenten uitgevoerd. Getallen onder de western-blot banden geven genormaliseerde target-eiwit/GAPDH-ratio's aan. ns, niet significant; *P < 0.05; **P < 0.01; ***P < 0.001. Klik hier om een grotere versie van deze figuur te bekijken.
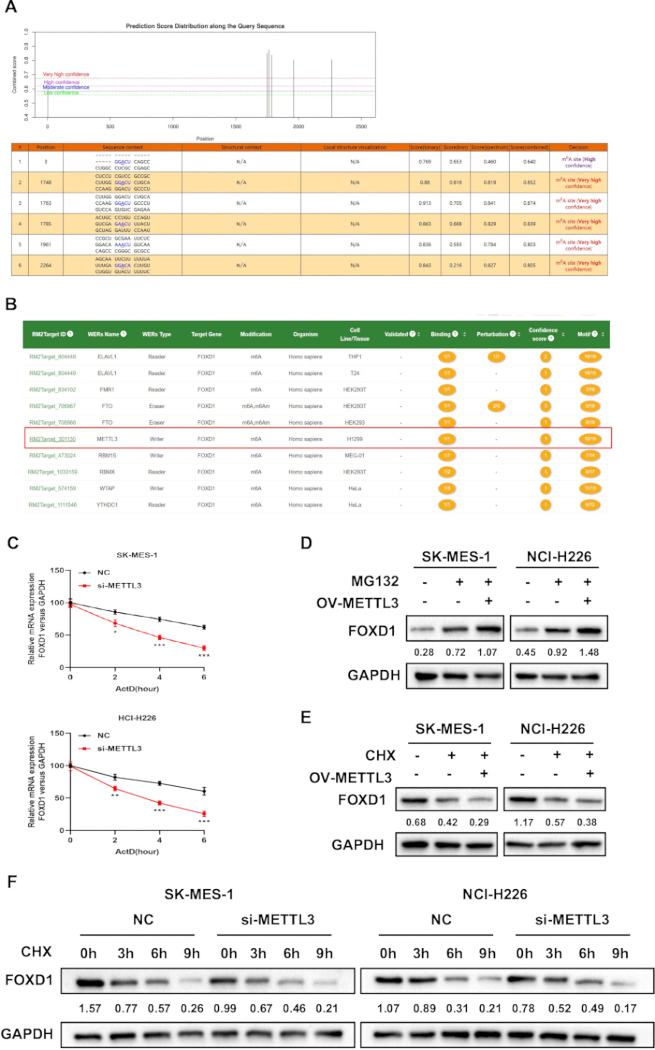
Figuur 5: METTL3 is geassocieerd met de regulatie van FOXD1-transcript en -eiwit. (A) Door SRAMP voorspelde N6-methyladenosine-sites binnen het FOXD1-transcript. (B) m6A2Target-voorspelling waarbij METTL3 is geïdentificeerd als een kandidaat-writer geassocieerd met FOXD1. (C) Relatieve FOXD1-mRNA-overvloed na behandeling met actinomycine D (5 µg/mL) in negatieve-controlecellen en METTL3-knockdowncellen op 0 h, 2 h, 4 h en 6 h. (D) FOXD1-eiwitovervloed in onbehandelde vector-controlecellen, met MG132 behandelde vector-controlecellen en met MG132 behandelde METTL3-overexpressiecellen (10 µM MG132). (E) FOXD1-eiwitovervloed in onbehandelde vector-controlecellen, met CHX behandelde vector-controlecellen en met CHX behandelde METTL3-overexpressiecellen (20 µM CHX). (F) FOXD1-eiwitexpressie na behandeling met CHX (20 µM) gedurende 0 h, 3 h, 6 h en 9 h in negatieve-controlecellen en METTL3-knockdowncellen. GAPDH diende als ladingscontrole. Celexperimenten werden uitgevoerd in drie onafhankelijke biologische replica's. De getoonde blots zijn representatief; getallen onder de banden geven genormaliseerde FOXD1/GAPDH-ratio's aan. *P < 0,05; **P < 0,01; ***P < 0,001. Klik hier om een grotere versie van deze figuur te bekijken.
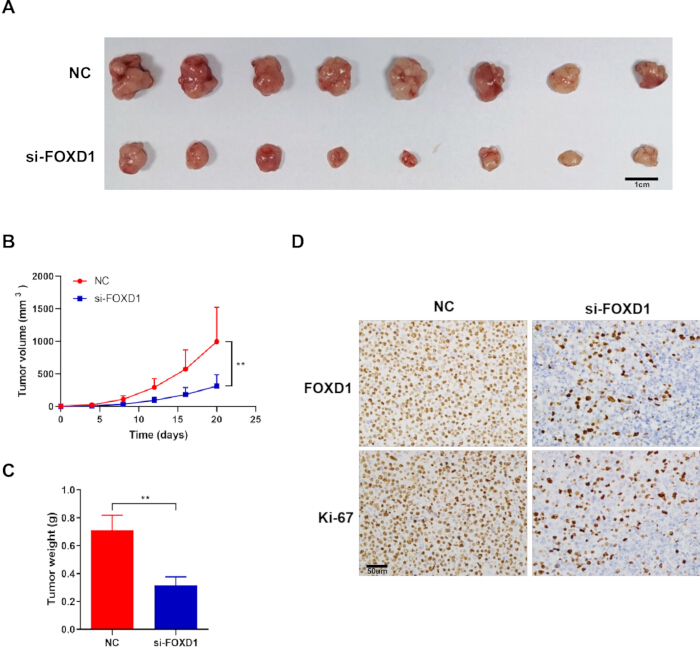
Figuur 6: FOXD1-knockdown onderdrukt de groei van SK-MES-1 xenografts. (A) Uitgesneden tumoren van de negatieve-controlegroep en de FOXD1-knockdowngroep; schaalbalk = 1 cm. (B) Tumorgroei gemeten elke 4 dagen gedurende 20 dagen, beginnend 1 week na implantatie, met verzameling op dag 27 na inoculatie. (C) Tumorgewicht bij verzameling. (D) Representatieve immunohistochemie voor FOXD1 en Ki-67 in xenograft-weefsel; schaalbalk = 50 µm. n = 8 muizen per groep; **P < 0.01. Klik hier om een grotere versie van deze figuur te bekijken.
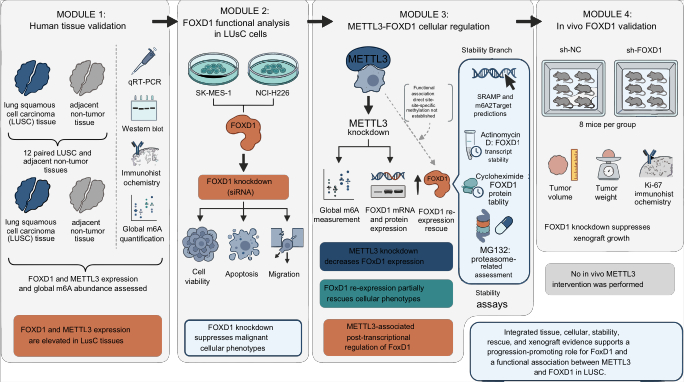
Figuur 7: Algemeen onderzoeksontwerp en bewijsgrenzen. Gepaarde LUSC-weefsels (n = 12 paren) en cellijnen werden gebruikt voor de profilering van FOXD1, METTL3 en globale m6A; genetische perturbatie en rescue werden gevolgd door assays voor levensvatbaarheid, apoptose, migratie en stabiliteit. Een FOXD1-knockdown xenograft-model (n = 8 muizen per groep) werd gedurende 20 dagen gemonitord. Het diagram maakt onderscheid tussen celgebaseerd METTL3-bewijs en FOXD1-specifiek in vivo bewijs en identificeert directe binding, site-specifieke m6A, reader-identiteit en in vivo METTL3-activiteit als niet getest. Klik hier om een grotere versie van deze figuur te bekijken.
| Gen | Richting | Sequence (5′–3′) |
| FOXD1 | Forward | TCTGAGTAACGCGTTATGCTT |
| FOXD1 | Reverse | CGGAATCGGACGCAAGTCTT |
| GAPDH | Forward | GGAGCGAGATCCCTCCAAAAT |
| GAPDH | Reverse | GGCTGTTGTCATACTTCTCATGG |
| METTL14 | Forward | CTGAAAGTGCCGACAGCATTGG |
| METTL14 | Reverse | CTCTCCTTCATCCAGATACTTACG |
| METTL3 | Forward | CCAGCACAGCTTCAGCAGTTCC |
| METTL3 | Reverse | GCGTGGAGATGGCAAGACAGATG |
| RBM15 | Forward | GTTGTGGCTTATGTGGAGTTTAC |
| RBM15 | Reverse | CACTTAAAACACCGGCATTGG |
| WTAP | Forward | GCAACAACAGCAGGAGTCTGCA |
| WTAP | Reverse | CTGCTGGACTTGCTTGAGGTAC |
Tabel 1: Primersequenties voor kwantitatieve reverse-transcriptie polymerasekettingreactie. Sequenties worden vermeld in de 5′–3′ richting.
Discussie
De huidige workflow ondersteunt een rol voor FOXD1 in LUSC over gepaarde weefsels, twee cellijnen en een xenograftmodel. FOXD1 was verhoogd in tumorstalen en LUSC-cellen, en de depletie ervan verminderde de levensvatbaarheid en migratie, terwijl de apoptose toenam. Deze bevindingen komen overeen met rapporten die FOXD1 koppelen aan groei, invasie, therapieresistentie en ongunstige uitkomsten bij verschillende vormen van kanker 10,11,12,13,21,22,23,24,25,26,27,28. Ze breiden bovendien eerdere LUSC-observaties uit door celgebaseerde fenotypes te verbinden met een FOXD1-knockdown xenograftexperiment.
De analyses van gepaarde weefsels en cellen brachten de abundantie van FOXD1 verder in verband met METTL3 en globale m6A. Vier writer-genen waren verhoogd in de 12 tumorparen, maar METTL3 vertoonde de sterkste positieve associatie met FOXD1. In gecultiveerde cellen verminderde de depletie van METTL3 de globale m6A en de abundantie van FOXD1, en herexpressie van FOXD1 redde gedeeltelijk de geassocieerde fenotypes voor levensvatbaarheid, apoptose en migratie. Deze gegevens ondersteunen een functionele METTL3-FOXD1-relatie in de geteste cellen, wat consistent is met de brede invloed van m6A-regulatie op maligne fenotypes29,30,31,32,33,34,35,36.
Verschillende protocolpunten zijn belangrijk voor de reproduceerbaarheid. De knockdown-efficiëntie moet in elke cellijn worden bevestigd vóór functionele assays, en rescue-condities moeten de herstelde FOXD1 verifiëren zonder het construct te interpreteren als METTL3-overexpressie. Behandelingen met Actinomycine D, CHX en MG132 moeten de in het protocol vermelde concentraties en bemonsteringstijden gebruiken. Celdichtheid, serumgradiënt en een consistent beeldveld moeten worden gecontroleerd in Transwell-assays. Als een onderzoeker de workflow aanpast, kunnen stabiel short hairpin RNA of genoommodificatie bij voorkeur worden ingezet voor in vivo experimenten met een lange duur, maar deze alternatieven vereisen onafhankelijke validatie.
De studie kent verschillende beperkingen. De menselijke cohort bestond uit 12 gepaarde monsters en was niet ontworpen voor uitkomstmodellering. Slechts één geselecteerd klein interfererend RNA werd gebruikt in functionele assays, waardoor sequentie-onafhankelijke validatie van off-target effecten niet is gerealiseerd. De interpretatie van de Western-blot is beperkt tot de genormaliseerde waarden die in de figuren worden weergegeven; er is geen post-hoc inferentiële toetsing uitgevoerd. Voorspellingen via SRAMP en m6A2Target, globale m6A-metingen en stabiliteitsassays zijn geen vervanging voor RNA-immunoprecipitatie, gemethyleerde RNA-immunoprecipitatie, site-directed mutagenese of reader-specifieke rescue. METTL3 werd in vivo niet verstoord, waardoor de xenograft-gegevens geen in vivo claim voor METTL3 kunnen ondersteunen.
Toekomstige studies zouden farmacologische METTL3-remming moeten testen, FOXD1-geassocieerde m6A-sites en directe binding in kaart moeten brengen, het relevante reader-eiwit moeten identificeren en de rescue-strategie in vivo moeten herhalen. Een grotere, onafhankelijk geannoteerde cohort zou ook nodig zijn om klinische uitkomsten te beoordelen. Binnen het huidige bereik ondersteunt de studie FOXD1 als een functionele LUSC-regulator en levert het celgebaseerd bewijs dat METTL3 de abundantie van FOXD1 beïnvloedt; het stelt echter geen volledig METTL3-m6A-reader-FOXD1-pad vast.
Openbaarmakingen
De auteurs verklaren dat zij geen belangenconflict hebben.
Bijdragen van de auteurs:
D.A. en Q.D. droegen bij aan de gegevensverzameling en de verwerving van klinische informatie. K.W. en S.F. voerden moleculaire biologie-experimenten en data-analyse uit. L.G. nam deel aan het onderzoeksontwerp en de interpretatie van de gegevens. H.Z. voerde de statistische analyse uit en hielp bij de validatie van de gegevens. Y.S. voerde dierproeven en immunohistochemische analyses uit. Q.P. droeg bij aan migratie-assays en experimentele middelen. G.L. bedacht en superviseerde de studie en schreef het conceptmanuscript. Alle auteurs hebben het manuscript beoordeeld, herzien en goedgekeurd.
Dankbetuigingen
De auteurs danken Zhe Tang en Yan Zhang voor respectievelijk technische assistentie bij de kwantitatieve polymerasekettenreactie en western blotting, en Yang Li voor assistentie bij de assays voor cellevensvatbaarheid en apoptose. Dit onderzoek werd gefinancierd door de Natural Science Foundation of Tibet Autonomous Region (Nr. XZ202001ZR0040G).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 7500 Fast Real-Time PCR System | Applied Biosystems | 7500 Fast | qRT-PCR (RRID: SCR_018051) |
| Actinomycin D | Sigma-Aldrich | SBR00013 | RNA-stabiliteitsassay, 5 µg/mL |
| Annexin V-FITC/PI apoptosekit | BD Biosciences | 556547 | Flowcytometrische apoptose |
| Athymische BALB/c naaktmuizen | N/A | N/A | Subcutane xenograft |
| BEAS-2B | Chinese Academy of Sciences Cell Bank | https://www.cellosaurus.org/CVCL_0168 | Niet-tumorale bronchiale epitheliale referentie; RRID: CVCL_0168 |
| Cell Counting Kit-8 | Beyotime | C0037 | Cellevensbaarheid |
| Kristalviolet | N/A | N/A | Transwell-kleuring, 10 min |
| Cycloheximide | MedChemExpress | HY-12320 | Proteïnestabiliteitsassays, 20 µM |
| DAB substraatkit | N/A | N/A | Immunohistochemische visualisatie |
| Dulbecco's modified Eagle medium | Gibco | 11995065 | Celkweek |
| Enhanced chemiluminescence reagens | Thermo Fisher Scientific | A38556 | Western-blot detectie |
| Foetaal runderserum | Gibco | 10091148 | Celkweek, 10% |
| Flowcytometer | N/A | N/A | Apoptosemeting |
| FOXD1 antilichaam | Thermo Fisher Scientific | PA5-27142 | Western blot, 1:1.000; immunohistochemie |
| FOXD1 overexpressieconstruct | N/A | N/A | FOXD1 rescue |
| GAPDH antilichaam | Cell Signaling Technology | 5174 | Western-blot loading controle, 1:2.000 (RRID: AB_10622025) |
| GEPIA | Peking University | http://gepia.cancer-pku.cn/ | Expressie- en correlatievragen; RRID: SCR_018294 |
| GraphPad Prism | GraphPad Software | Versie 8 | Statistische analyse; RRID: SCR_002798 |
| Meerdaalkruidperoxidase-geconjugeerd anti-konijn immunoglobuline G | N/A | N/A | Western blot, 1 u bij kamertemperatuur |
| ImageJ | National Institutes of Health | https://imagej.nih.gov/ij/ | Kwantificering van migratiebeelden; RRID: SCR_003070 |
| Ki-67 antilichaam | N/A | N/A | Xenograft immunohistochemie |
| m6A2Target | Webbron | http://m6a2target.canceromics.org/ | Voorspelde m6A regulator-target associatie |
| Methyltransferase-like 3 antilichaam | Proteintech | 15073-1-AP | Western blot, 1:1.000; RRID: AB_2142033 |
| MG132 | MedChemExpress | HY-13259 | Proteasoom-inhibitieassay, 10 µM |
| N6-methyladenosine colorimetrische assay | Epigentek | P-9005-96 | Globale m6A-meting |
| NCI-H226 | Chinese Academy of Sciences Cell Bank | https://www.cellosaurus.org/CVCL_1544 | LUSC-celmodel; RRID: CVCL_1544 |
| Olympus microscoop | Olympus | Model niet geregistreerd | Transwell-beeldvorming |
| Penicilline-streptomycine | Gibco | 10378016 | Celkweek, 1% |
| Polyvinylideenfluoride membraan | Merck | IPVH00010 | Western-blot transfer |
| PrimeScript reverse-transcriptie reagenskit | Takara | RR037A | Complementaire DNA-synthese |
| R Project for Statistical Computing | R Foundation | https://www.r-project.org/ | Statistische analyse; RRID: SCR_001905 |
| Radioimmunoprecipitatie-assay lysebuffer | Beyotime | P0013B | Proteïne-extractie |
| RNAiso Plus | Takara | 9108 | RNA-extractie |
| siRNA reagentia | N/A | N/A | FOXD1- en METTL3-knockdown; siRNA-1 geselecteerd |
| SK-MES-1 | Chinese Academy of Sciences Cell Bank | https://www.cellosaurus.org/CVCL_0630 | LUSC-cel- en xenograftmodel; RRID: CVCL_0630 |
| SRAMP | Webbron | http://www.cuilab.cn/sramp | Kandidaat FOXD1 m6A-site voorspelling |
| TB Green PCR master mix | Takara | RR820A | qRT-PCR |
| Transfectiereagens | N/A | N/A | Aflevering van siRNA en plasmide |
| Transwell inserts | N/A | N/A | Migratieassay |
Referenties
- Li MY, Liu LZ, Dong M. Progress on pivotal role and application of exosome in lung cancer carcinogenesis, diagnosis, therapy and prognosis. Mol Cancer. 2021;20(1):22.
- Hirsch FR, et al. Lung cancer: current therapies and new targeted treatments. Lancet. 2017;389(10066):299-311.
- Li Y, et al. Transcriptomic and functional network features of lung squamous cell carcinoma through integrative analysis of GEO and TCGA data. Sci Rep. 2018;8(1):15834.
- Fu L, et al. The value of CEP55 gene as a diagnostic biomarker and independent prognostic factor in LUAD and LUSC. PLoS One. 2020;15(5):e0233283.
- Chen TJ, et al. MicroRNA-665 facilitates cell proliferation and represses apoptosis through modulating Wnt5a/β-catenin and Caspase-3 signaling pathways by targeting TRIM8 in LUSC. Cancer Cell Int. 2021;21(1):215.
- Chen C, et al. CXCL5 induces tumor angiogenesis via enhancing the expression of FOXD1 mediated by the AKT/NF-κB pathway in colorectal cancer. Cell Death Dis. 2019;10(3):178.
- Wu Q, et al. FOXD1-AS1 regulates FOXD1 translation and promotes gastric cancer progression and chemoresistance by activating the PI3K/AKT/mTOR pathway. Mol Oncol. 2021;15(1):299-316.
- Chen Y, Liang W, Liu K, Shang Z. FOXD1 promotes EMT and cell stemness of oral squamous cell carcinoma by transcriptional activation of SNAI2. Cell Biosci. 2021;11(1):154.
- Liang H, et al. FOXD1 is a prognostic biomarker and correlated with macrophages infiltration in head and neck squamous cell carcinoma. Biosci Rep. 2021;41(7):BSR20202929.
- Zhao YF, et al. FOXD1 promotes breast cancer proliferation and chemotherapeutic drug resistance by targeting p27. Biochem Biophys Res Commun. 2015;456(1):232-7.
- Nakayama S, et al. FOXD1 expression is associated with poor prognosis in non-small cell lung cancer. Anticancer Res. 2015;35(1):261-8.
- Li D, et al. FOXD1 promotes cell growth and metastasis by activation of vimentin in NSCLC. Cell Physiol Biochem. 2018;51(6):2716-2731.
- Chen C, et al. miR-30a-5p inhibits proliferation and migration of lung squamous cell carcinoma cells by targeting FOXD1. Biomed Res Int. 2020;2020:2547902.
- Chen XY, Zhang J, Zhu JS. The role of m(6)A RNA methylation in human cancer. Mol Cancer. 2019;18(1):103.
- Jiang X, et al. The role of m6A modification in the biological functions and diseases. Signal Transduct Target Ther. 2021;6(1):74.
- Ma Z, Ji J. N6-methyladenosine (m6A) RNA modification in cancer stem cells. Stem Cells. 2020;38(12):1511-1519.
- Gao R, et al. m6A modification: a double-edged sword in tumor development. Front Oncol. 2021;11:679367.
- He L, et al. Functions of N6-methyladenosine and its role in cancer. Mol Cancer. 2019;18(1):176.
- Sun T, Wu R, Ming L. The role of m6A RNA methylation in cancer. Biomed Pharmacother. 2019;112:108613.
- An Y, Duan H. The role of m6A RNA methylation in cancer metabolism. Mol Cancer. 2022;21(1):14.
- Sack LM, et al. Profound tissue specificity in proliferation control underlies cancer drivers and aneuploidy patterns. Cell. 2018;173(2):499-514.e23.
- Vazquez A, et al. Cancer metabolism at a glance. J Cell Sci. 2016;129(18):3367-73.
- Cai K, et al. FOXD1 facilitates pancreatic cancer cell proliferation, invasion, and metastasis by regulating GLUT1-mediated aerobic glycolysis. Cell Death Dis. 2022;13(9):765.
- Zhou L, et al. Down-regulation of miR-30a-5p is associated with poor prognosis and promotes chemoresistance of gemcitabine in pancreatic ductal adenocarcinoma. J Cancer. 2019;10(21):5031-5040.
- Pan F, Li M, Chen W. FOXD1 predicts prognosis of colorectal cancer patients and promotes colorectal cancer progression via the ERK 1/2 pathway. Am J Transl Res. 2018;10(5):1522-1530.
- Qiu S, et al. Diagnostic and prognostic value of FOXD1 expression in head and neck squamous cell carcinoma. J Cancer. 2021;12(3):693-702.
- Wu T, et al. miR-30e-5p-mediated FOXD1 promotes cell proliferation by blocking cellular senescence and apoptosis through p21/CDK2/Rb signaling in head and neck carcinoma. Cell Death Discov. 2023;9(1):295.
- Sun Q, et al. FOXD1 promotes dedifferentiation and targeted therapy resistance in melanoma by regulating the expression of connective tissue growth factor. Int J Cancer. 2021;149(3):657-674.
- Wang T, Kong S, Tao M, Ju S. The potential role of RNA N6-methyladenosine in cancer progression. Mol Cancer. 2020;19(1):88.
- Zeng C, Huang W, Li Y, Weng H. Roles of METTL3 in cancer: mechanisms and therapeutic targeting. J Hematol Oncol. 2020;13(1):117.
- Haussmann IU, et al. m6A potentiates Sxl alternative pre-mRNA splicing for robust Drosophila sex determination. Nature. 2016;540(7632):301-304.
- Liu N, et al. N(6)-methyladenosine-dependent RNA structural switches regulate RNA-protein interactions. Nature. 2015;518(7540):560-4.
- Kennedy EM, et al. Posttranscriptional m6A editing of HIV-1 mRNAs enhances viral gene expression. Cell Host Microbe. 2016;19(5):675-685.
- Lin S, et al. The m(6)A methyltransferase METTL3 promotes translation in human cancer cells. Mol Cell. 2016;62(3):335-345.
- Han J, et al. METTL3 promote tumor proliferation of bladder cancer by accelerating pri-miR221/222 maturation in m6A-dependent manner. Mol Cancer. 2019;18(1):110.
- Li A, et al. Cytoplasmic m(6)A reader YTHDF3 promotes mRNA translation. Cell Res. 2017;27(3):444-447.