Wij presenteren een Driedimensionale Gestimuleerde Emissie Depletie (3D STED) workflow die opname-assays en farmacologische perturbatie combineert om membraaneiwit-transport te visualiseren in intacte Drosophila vleugelschijven met een bijna-isotrope superresolutie.
Methodenartikel
Visualisatie van proteïnetransport in de context van volledig weefsel met behulp van superresolutie-nanoscopie in Drosophila
In dit artikel
Samenvatting
Samenvatting
De fruitvlieg Drosophila melanogaster wordt op grote schaal gebruikt om geconserveerde ontwikkelings- en cellulaire signaleringspaden in vivo te bestuderen. Veel signaleringspaden, waaronder de Wnt-signalering, zijn afhankelijk van nauw gereguleerde secretie, endocytose en intracellulaire transportprocessen. Het visualiseren van de dynamiek van membraangeassocieerde eiwitten binnen intacte epitheliale weefsels, zoals vleugelimaginale schijven, blijft echter een uitdaging vanwege de geringe omvang en de dicht opeengepakte kolomvormige organisatie van deze cellen. Hier presenteren wij een protocol dat driedimensionale gestimuleerde emissie-depletie (3D STED) nanoscopie combineert met opname-assays en farmacologische verstoringen in Drosophila vleugelimaginale schijven. Deze workflow maakt superresolutie-imaging van membraangeassocieerde eiwitdynamiek binnen intacte weefselarchitectuur mogelijk met een bijna isotrope resolutie. Met Wingless-secreterende cellen als voorbeeld visualiseren we de lokalisatie en het transport van Wingless (Wg) aan het apicale membraan. Om dynamische transportprocessen te analyseren, wordt de imaging-workflow gecombineerd met een opname-assay die selectief eiwitten labelt die secretie en reinternalisatie ondergaan binnen een gedefinieerd tijdsbestek. In combinatie met chemische remmers en visualisatie met 3D STED nanoscopie maakt deze aanpak een functionele analyse van membraantransportdynamiek mogelijk. Samen biedt deze workflow een veelzijdig kader voor het bestuderen van membraanorganisatie en eiwittransport op subcellulair niveau in volledige weefselmonsters van Drosophila.
Inleiding
De fruitvlieg Drosophila melanogaster is een veelgebruikt modelorganisme in de ontwikkelingsbiologie, evolutie, gedragskunde en biomedisch onderzoek, inclusief de studie naar kanker en andere menselijke ziekten1,2. Veel fundamentele cellulaire signaleringspaden zijn sterk geconserveerd tussen Drosophila en gewervelden, waardoor dit modelsysteem bijzonder waardevol is voor het onderzoeken van geconserveerde biologische mechanismen in vivo.
In dit protocol wordt de imaginale schijf van de Drosophila-vleugel gebruikt als modelsysteem om membraangeassocieerde dynamiek binnen de Wingless (Wg)/Wnt-signaleringsroute te bestuderen. Veel ontwikkelingsgerelateerde signaleringsroutes zijn afhankelijk van nauw gereguleerde secretie, membraanlokalisatie, endocytose en intracellulair transport van signaleringsmoleculen3. Dit is ook het geval bij de dorsoventrale (DV) grens van de imaginale vleugelschijf, waar Wg vanuit producerende cellen aan het apicale membraan wordt uitgescheiden en via interacties met glypicanen naar naburige ontvangende cellen wordt getransporteerd4,5,6,7. In recipientencellen bindt Wg aan Frizzled-receptoren en activeert dit de downstream Wnt-signalering. Naast de pool van Wg die van de DV-grens wordt weggetransporteerd, wordt een fractie van Wg opnieuw geïnternaliseerd door de producerende cellen en via het endosomale systeem getransporteerd naar verschillende intracellulaire bestemmingen8,9,10. De Wg-producerende cellen bij de DV-grens vormen daarom een uitstekend model voor het onderzoeken van membraantransport, secretiedynamiek en de cellulaire mechanismen die de signaleringsactiviteit in vivo reguleren.
De sterkly columnaire architectuur van epitheelcellen in imaginale schijven maakt visualisatie echter uitdagend; om individuele vesikels te kunnen onderscheiden is een hogere, meer isotrope resolutie nodig dan conventionele confocale microscopie kan bieden. Om deze beperkingen te overwinnen, hebben we de weefselpreparatie, kleuring en beeldvormingscondities geoptimaliseerd voor superresolutie-nanoscopie in intacte Drosophila-weefsels. In het bijzonder hebben we een workflow opgezet voor driedimensionale gestimuleerde emissie-depletie (3D STED) nanoscopie, die orthogonale visualisatie van de lokalisatie van membraangeassocieerde eiwitten langs de apicaal-basale as van het epitheel mogelijk maakt11,12. 3D STED is bijzonder goed geschikt voor deze toepassing omdat het een verbeterde axiale resolutie biedt in vergelijking met conventionele confocale microscopie, waardoor de visualisatie van fijne subcellulaire structuren in dichtgepakte weefsels mogelijk wordt13,14. Met deze aanpak hebben we de apicale membraanregio van Wg-secreterende cellen bij de DV-grens van de imaginale vleugelschijf geanalyseerd en Wg gedetecteerd bij het apicale membraan, samen met andere membraangeassocieerde eiwitten, zoals Discs large 1 (Dlg1) of Evenness interrupted/Wntless (Evi/Wls).
Om de dynamiek van eiwittransport verder te onderzoeken, werd deze imaging-workflow gecombineerd met een eerder vastgestelde opname-assay15. Deze assay maakt de selectieve detectie mogelijk van eiwitten die secretie en daaropvolgende re-internalisatie hebben ondergaan binnen een gedefinieerd tijdsbestek, waardoor een dynamische pool van eiwitten die door het plasmamembraan transporteren, gevisualiseerd kan worden. Om de bruikbaarheid ervan uit te breiden, werd de opname-assay gecombineerd met farmacologische perturbaties, wat analyse mogelijk maakte van hoe specifieke cellulaire processen de dynamiek van membraantransport beïnvloeden. Samen bieden deze benaderingen een krachtig kader voor het bestuderen van eiwittransport, secretie en signaleringsmechanismen in hun natuurlijke weefselcontext met een hoge ruimtelijke resolutie.
Bovendien is het protocol compatibel met een breed scala aan kleuringsbenaderingen, waaronder standaard immunofluorescentieprotocollen. De incorporatie van fluorescerende kleurstoffen is ook mogelijk, waardoor het bereik van cellulaire structuren en moleculaire doelwitten die gevisualiseerd kunnen worden, verder wordt uitgebreid. In alle gevallen moeten fluoroforen worden geselecteerd op compatibiliteit met STED-nanoscopie. Hoewel het huidige protocol zich richt op tweekleurige (rood en ver-rood) 3D STED-imaging, kan de workflow eenvoudig worden aangepast aan aanvullende fluoroforen en alternatieve imagingconfiguraties, waardoor de flexibiliteit voor diverse experimentele toepassingen wordt vergroot.
Samen vormt dit protocol een veelzijdig kader voor het combineren van STED-superresolutie-nanoscopie met functionele perturbatiebenaderingen in intacte Drosophila-weefsels. De workflow biedt een basis voor toekomstige studies naar membraanorganisatie, proteintransport en signaleringsdynamiek met subcellulaire resolutie binnen complexe weefselomgevingen.
Protocol
1. Gecombineerde ex vivo remmerbehandeling en opname-assay
OPMERKING: Raadpleeg de Tabel met materialen voor gedetailleerde informatie over de gebruikte chemicaliën en materialen.
- Bereiding van medium en oplossingen
- Bereid SchM+ medium.
- Voeg 4% foetaal kalfsserum (FBS) toe aan Schneider’s insect medium en meng dit goed.
OPMERKING: Het SchM+-medium moet vers worden bereid op de dag van het experiment.
- Voeg 4% foetaal kalfsserum (FBS) toe aan Schneider’s insect medium en meng dit goed.
- Bereid 1 voor× PBS-T.
- Voeg 0,1% Triton X-100 toe aan 1× fosfaatgebufferde zoutoplossing (PBS) en meng goed.
- Bereid oplossingen van chemische verbindingen.
WAARSCHUWING: Veel van de volgende chemische verbindingen worden als cytotoxisch beschouwd; zorgvuldige hantering in een zuurkast met适当 apparatuur en correcte afvoer van afvalstoffen is essentieel.- Dynasor2-24: Los Dynasor2-24 (ook bekend als Dyngo-4a) op in dimethylsulfoxide (DMSO), volgens de instructies van de fabrikant, om een stockoplossing van 10 mM te bereiden. Voor de behandeling wordt de stockoplossing 1:1000 of 1:2000 verdund in SchM+ om eindconcentraties te verkrijgen van 10 µM of 5 µMrespectievelijk.
- DMSO-controle: Verdun DMSO 1:1000 in SchM+ en gebruik dit 200 µL als negatieve controle in elk experiment.
- Bereid de zure buffer voor de opname-assay.
- Bereid een oplossing van 0,1 M glycine in dH2O.2O.
- Stel de pH bij naar 3,5 met 37% HCl (zoutzuur).
- Bereid SchM+ medium.
- Monstername
- Houd vliegen bij 25 °C met een licht/donkercyclus van 12/12 uur.
- Verzamel L3-larven (larvastadium 3) uit de vials met een pincet en plaats deze in een glazen kleurplaat met 12 putjes, waarbij elk putje is gevuld met SchM+.
OPMERKING: Bereid voldoende weefsel voor zodat er in elke experimentele herhaling altijd controlemonsters kunnen worden opgenomen. - Open de larven aan het posterieure uiteinde en keer ze om.
- Verwijder de darm en het vetlichaam zo grondig mogelijk uit het omgekeerde larvale weefsel, terwijl het weefsel ondergedompeld blijft in SchM+.
- Breng het weefsel vervolgens over naar een PCR-buisje van 0,2 mL met SchM+.
OPMERKING: we plaatsen slechts 6-7 omgekeerde larven per polymerasekettingreactie-buisje (PCR-buisje) om volledige onderdompeling en vrije beweging van het weefsel te garanderen.
OPMERKING: Het overvullen van de buis met weefsel dient te worden vermeden om artefacten tijdens het kleuren te voorkomen. Raadpleeg de Tabel met materialen voor gedetailleerde informatie over de chemicaliën en materialen die in deze studie zijn gebruikt.
- Ex vivo behandeling met inhibitor en opname-assay
- Verwijder het SchM+-medium uit het monster.
- Voeg naar behoefte de eerder bereide oplossing van de chemische verbinding toe, bijv. 200 µL van 5 µM Dynasor2-24-oplossing.
WAARSCHUWING: Deze chemische verbindingen worden als cytotoxisch beschouwd; zorgvuldige hantering in een zuurkast met geschikte apparatuur en passende afvalverwerking is essentieel. - Voeg toe 200 µL van DMSO-oplossing (1:1000) aan de controlemonster, wat dient als negatieve controle.
- Voor de opname-assay (Witte et al., 202115), voeg het primaire antilichaam toe aan de drugoplossing: gebruik voor anti-Wg een verdunning van 1:20 voor de detectie van Wg, en gebruik voor anti-GFP voor de detectie van met groen fluorescent proteïne (GFP) gelabelde eiwitten een verdunning van 1:40.
- Incubeer de monsters gedurende 90 min bij kamertemperatuur (KT) in het donker.
OPMERKING: De opname-assay is optioneel en kan eenvoudig uit het protocol worden weggelaten indien deze niet nodig is. Daarnaast kunnen andere chemische verbindingen worden gebruikt, afhankelijk van de experimentele vraagstelling. Het wordt aanbevolen om de verbinding te titreren en de optimale concentratie voor elke individuele toepassing te bepalen. Raadpleeg de Tabel met materialen voor gedetailleerde informatie over de chemicaliën en materialen die in deze studie zijn gebruikt.
- Fixatie van monsters
- Verwijder de kleuringsoplossing uit stap 1.3 direct na de incubatietijd.
- (Optioneel) Spoel de monsters twee keer met 200 µL van SchM+.
- Was het weefsel gedurende 5 min met de zure buffer bij kamertemperatuur (KT) voor een correcte verwijdering van het primaire antilichaam van de opname-assay.
- Was snel 3× gedurende 3 min met SchM+.
- Fixeer de monsters in 4% formaldehyd in SchM+ gedurende 30 min bij RT.
- Incubatie van het primaire antilichaam
OPMERKING: Indien er, naast het antilichaam dat in de opname-assay wordt gebruikt, een aanvullend primair antilichaam vereist is, dient dit in deze fase te worden toegevoegd en verwerkt volgens de standaardprocedures voor immunohistochemische kleuring.- Blokeer het weefsel met 4% normaal geiten serum in 1× PBS-T gedurende ten minste 30 min bij RT onder zachte agitatie.
- Verwijder de blokkeringsoplossing.
- Voeg primaire antilichaamoplossing toe in 1× PBS in de gewenste concentratie (voorbeelden: anti-wg 1:200, anti-dlg1 1:50 of anti-GFP 1:200, of elk ander benodigd antilichaam)
- Incubeer de monsters bij 4 °C gedurende de nacht onder milde agitatie.
- (Optioneel) Voer de incubatie met het primaire antilichaam gedurende ten minste 1,5 uur uit bij kamertemperatuur onder zachte schudding.
- OPMERKING: Raadpleeg de Tabel van materialen voor gedetailleerde informatie over de chemicaliën en materialen die in deze studie zijn gebruikt.
- Incubatie van het secundaire antilichaam
- Verwijder de primaire antilichaamoplossing.
OPMERKING: Gebruikte primaire antilichaamoplossing in 1× PBS kan meerdere keren worden hergebruikt wanneer het wordt bewaard in een schone reactiebuis van 1,5 mL bij 4 °C. - Was weefsel 3× 10 min in 1× PBS-T onder voorzichtig schudden.
Voeg de gewenste secundaire antilichamen toe in een verdunning van 1:200 in 1× PBS-T met 1:2000 Hoechst33342 voor tegenkleuring van de kernen. Secundaire antilichamen voor STED omvatten chicken anti-mouse Alexa Fluor 594, goat anti-rabbit Alexa Fluor 594, goat anti-rabbit STAR635P en goat anti-mouse STAR635P. Raadpleeg de Tabel met materialen voor gedetailleerde informatie over de chemicaliën en materialen die in deze studie zijn gebruikt. - Incubeer gedurende de nacht in het secundaire antilichaam bij 4 °C (Optioneel: minstens 1,5 u incuberen onder zachte schudding bij RT).
- Was het weefsel de volgende dag 3 keer× 10 min in 1× PBS-T onder zachte agitatie. De monsters zijn nu klaar om gemonteerd te worden voor STED-imaging. Bekijk de volledige workflow Figuur 1.
OPMERKING: Microscoopoptiek is doorgaans ontworpen voor 23 °C bedrijf, tenzij andere condities vereist zijn. Temperatuurstabiliteit is cruciaal, aangezien schommelingen thermische drift veroorzaken en de timing van de laser kunnen beïnvloeden. Een stabiele kamertemperatuur van 20–23 °C (≤ ±±1 °C (fluctuaties) wordt aanbevolen16., met 21,5–22 °C vaak ter compensatie van de door de microscoop gegenereerde warmte. Alle microscoopcomponenten moeten een thermisch evenwicht bereiken vóór de beeldvorming. Stage-top incubatoren zorgen voor een nauwkeurige temperatuurregeling van het monster, maar behuizingen kunnen warmte vasthouden en de drift verhogen. Actieve koeling verbetert de stabiliteit. In deze studie hield een op maat gebouwde incubator (EMBL Heidelberg) een temperatuur van 21,5 ±± 0.05 °Cwaardoor thermische drift wordt geminimaliseerd en een stabiele 3D-STED-prestatie wordt gegarandeerd.
- Verwijder de primaire antilichaamoplossing.
2. Monsterpreparatie voor 3D STED super-resolutie nanoscopie en beeldvorming
- Voorbereidingen van apparatuur en materialen:
- Stel de microscoop in.
- Zorg ervoor dat er een geschikte microscoop voor het experiment wordt gebruikt. In dit geval is de Leica Stellaris 8 STED Falcon-microscoop gebruikt.
- Gebruik een geschikt objectief. In dit geval werd een HC PL APO 86x/1.20 W motCORR STED white objectief gebruikt.
- Schakel de volledige microscoopopstelling minimaal 2 uur vóór het imagen in om een juiste beeldvorming mogelijk te maken (zie OPMERKING na stap 1.6.4).
- Bereid platen voor die zijn gecoat met poly-L-lysine.
- Bereid een poly-L-lysine-oplossing met 0,6% poly-L-lysine en 0,002% Photo Flo in dH2O.2O. Verdeel de oplossing in aliquots en bewaar deze voor langdurige opslag bij -20 °CNa het ontdooien bewaren bij 4 °C en tot 10 keer hergebruiken.
- Toevoegen 200 µL van poly-L-lysine-oplossing op de glazen dekglasbodem van 1,5H µ-schaal (∅35 mm)
- Plaats de schaaltjes schuin rechtopstaand om te drogen.
- Nadat de poly-L-lysine-oplossing volledig is opgedroogd, wordt de coating nogmaals herhaald.
- Breng zorgvuldig nagellak-spacers aan aan beide zijden van de glazen bodem van het dekglas
- Bedek na het mounten de monsters met 1,5H ronde (∅12 mm) dekglasplaatjes (zie Figuur 2).
- Stel de microscoop in.
- Montageopstelling voor 3D STED
- OPMERKING: Voor 3D STED-nanoscopie (zie de OPMERKING na stap 2.2.12) is het essentieel om de brekingsindices van het STED-objectief en het montagemedium op elkaar af te stemmen (voorbeeld hier: waterobjectief en 1× PBS-montagemedium).
- Plaats de monsters in een kleine petrischaal gevuld met 1× PBS.
- Toevoegen 15 µL van 1× PBS als een druppel op de eerder geprepareerde met poly-L-lysine gecoate schaal.
- Dissekeer de imaginale schijven van de vleugel uit het overgebleven larvale weefsel en plaats deze in een 15 µL 1× PBS-druppel.
- Zorg ervoor dat de vleugelschijven aan het gecoate dekglas vastzitten en niet drijven.
- Druk de schijven niet met kracht aan; laat ze zo voorzichtig mogelijk op het dekglas zakken. Voor de juiste oriëntatie moet worden gewaarborgd dat de vleugelschijven zodanig zijn gemonteerd dat het peripodale membraan naar beneden, richting het dekglas, is gericht.
- Bedek na het monteren de monsters met 1,5 H ronde (∅dekglaasjes (12 mm).
- Zorg ervoor dat de randen van het dekglas op de eerder aangebrachte nagellak-spacers rusten om te voorkomen dat het monster wordt platgedrukt.
- Zegel het dekglas aan alle zijden af met nagellak om verdamping van het medium voor het inklaren te voorkomen.
- Bewaar de schaaltjes in het donker tot de definitieve beeldvorming.
- Pas de temperatuur van het monster aan aan de temperatuur van de incubatiekamer van de microscoop door het monster ten minste 30 min vóór de beeldvorming in de microscoop in de incubatiekamer te plaatsen.
- Om elke beweging van het monster te voorkomen, dient u de schaal in de microscopiehouder te stabiliseren met een drukgevoelige kleefstof (bijv. Blu Tack).
OPMERKING: De termen 2D STED en 3D STED beschrijven het type resolutieverbetering, niet of er een enkel beeld of een z-stack wordt verkregen12,172D STED verbetert alleen de laterale (x,y) resolutie, gewoonlijk tot <50 nm, terwijl de axiale (z) resolutie vergelijkbaar blijft met die van confocale microscopie (~600 nm). Het is relatief robuust en tolereert over het algemeen een imperfecte matching van de brekingsindex tussen het monster en het immersievloeistof van het objectief123D STED verbetert zowel de laterale als de axiale resolutie, met een bijzonder sterke verbetering langs de z-as. Door de fluorofoor en de STED-depletiecondities te optimaliseren, kan in biologische monsters een bijna isotrope resolutie van ~100-120 nm worden bereikt.17,18Het 3D STED-depletiepatroon is echter zeer gevoelig voor sferische aberraties. Succesvolle beeldvorming vereist daarom een zorgvuldige afstemming van de brekingsindex en een nauwkeurige instelling van de correctiering van het objectief op de werkelijke dikte van het dekglas.
- Vereisten en opstelling voor nanoscopie
- Schakel alle benodigde microscoopapparatuur in volgens de instructies van de fabrikant.
- Zet de laserschakelaars nog niet aan.
- Stel de temperatuur van de incubatiekamer van de microscoop in op 22–23 °C ten minste 1,5 uur vóór de beeldvorming.
- Plaats ook het monster in de microscoopkamer en laat het gedurende ten minste 30 minuten acclimatiseren aan de temperatuur.
- Zet de computer aan en open de software LAS X (versie 4.9.0).
- Selecteren STED-beeldvorming in het openingsvenster en start de software op
- Zodra de software is geladen, draait u de veiligheidssleutels van beide lasers om wanneer hun lampjes een groene kleur vertonen.
- Ga naar de Verkrijgen klik op het tabblad en selecteer het juiste STED-objectief (HC PL APO 86x/1.20 W motCORR STED).
- Ga naar de Configuratie ga naar het tabblad en klik op de knop voor Laserconfiguratie.
- Klik op alle laserschuifregelaars om ze in te schakelen AAN.
- Ga naar de Configuratie tab en klik op de knop voor STED.
- Klikken Lijn de stralen uit.
- Herhaal de uitlijning van de stralen na 30 minuten en 2 uur beeldvorming om een optimale uitlijning te waarborgen – herhaal dit indien nodig, bijvoorbeeld wanneer een afname in resolutie of een hogere achtergrond wordt waargenomen
- Lijn de correctiering (gemotoriseerd) van het object uit op de dikte vanhet dekglas aan de hand van het reflectiesignaal van het oppervlak van het dekglas:
- Ga naar de Verkrijgen druk op tab en begin met het instellen van de motCORR-waarde.
- Maak een nieuw kanaal voor GFP-fluorescentie in confocaal modus en stel scherp op de cellen van het preparaat.
- Klik op de Live knop en verplaats het monster naar een positie waar geen monster aanwezig is.
- Stop de live-imaging.
- Zorg ervoor dat voor dit kanaal uitsluitend de HyDS-detector wordt gebruikt.
- Stel de Notchfilter configuratie naar Reflectie.
- Klik op de Oriëntatie knop en selecteer xyz-oriëntatie.
- Verlaag de snelheid van de fast live imaging naar 100 Hz als het monster instabiel lijkt of beweging in de z-as vertoont.
- Start de live-imaging door te klikken op de Snel Live knop
- Zoek het dekglas van het monster, dat zichtbaar zal zijn als een lijn
- Pas de motCORR-waarde aan totdat het signaal van deze lijn zo scherp en smal mogelijk is
OPMERKING: Bij een 1,5H-dekglaasje ligt de waarde doorgaans in het bereik van 48–56%. - Selecteer nu de kanalen voor beeldvorming in de Verkrijgen tab.
- Verwijs naar Tabel 1 voor de instellingen voor de detectie van Alexa Fluor 594 en STAR635P in STED-modus.
- Beeldvorming
- Selecteer het beeldveld via de oculairs van de microscoop.
- Draai het monster voorzichtig om de DV-grens verticaal uit te lijnen (Figuur 2).
- Sluit de sluiter van de microscoop en schakel over naar confocale beeldvorming, waarbij de microscoop via de computer wordt bediend.
- Klik Snel Live knop, stel de focus in en controleer de oriëntatie van de DV-grens.
- Stop de live imaging.
- (Optioneel) Maak in dit stadium een overzichtsafbeelding in de xyz-oriëntatie in confocale modus (stel de STED-laser in beide kanalen in op 0%) voor latere referentie. Zet de STED-laser AAN na het maken van de overzichtsafbeelding.
- Selecteer de xzy-oriëntatie en pas de verschijnende lijn aan naar het exacte gebied voor orthogonale beeldvorming.
- Klik op de Snel Live knop en stel indien nodig de focus bij.
- Pas de x-positie van het monster aan met behulp van het z-wiel op de microscoop.
- Zorg ervoor dat de STED-lasers voor beide kanalen zijn ingeschakeld en dat alle instellingen correct zijn.
- Klik Start experiment.
- De intensiteit per pixel (detector in foton-telmodus) ligt tussen de 50 en 300 gedetecteerde fotonen; dit is tevens afhankelijk van het laservermogen, de pixelverblijftijd en het aantal toegepaste lijnaccumulaties. Indien de module voor fluorescentielevensduurmetingen (FLIM) (Falcon) toegankelijk is, dient te worden bevestigd dat er minder dan één foton per laserpuls wordt gedetecteerd.
- Pas de waarden aan naar behoefte voor het individuele monster.
- Uitdagingen voor STED-nanoscopie
- Om een specifiek morfologisch gebied in 3D STED te visualiseren, draait en oriënteert u het monster bij de microscoop om het weefsel nauwkeurig uit te lijnen met de vereiste as voordat u overschakelt van het XY-aanzicht naar het XZ-aanzicht. Behaal deze vrijheid door montage op ronde schaaltjes die kunnen worden verplaatst volgens de experimentele vereisten (Figuur 2).
- Tijdens xz-scanning wordt het monster fysiek langs de z-as bewogen, waardoor het schaaltje aanvankelijk licht in het xy-vlak bewoog door de oscillaties langs de verticale as. Om elke beweging van de schaaltjes te voorkomen, wordt het schaaltje met bevestigingsklei (Blu Tack) op de houder voor microscopie-monsters gefixeerd. Dit maakte vrije rotatie mogelijk, terwijl verticale beweging (z-as) werd voorkomen.
- Om verdamping van het montage medium en uitdroging van het weefsel te voorkomen, werden de dekglasjes afgedicht met nagellak.
- Om drift van het monster te voorkomen als gevolg van temperatuurverschillen tussen het monster en de microscoop, moeten de monsters ten minste 30 minuten vóór de beeldvorming in de incubatiekamer van de microscoop worden geplaatst, zodat ze kunnen acclimatiseren aan de temperatuur van de microscoop.16.
- Volg voor de selectie van het secundaire antilichaam de onderstaande stappen:
- Een breed scala aan fluoroforen is geschikt voor STED-imaging, maar slechts een subset combineert gunstige fotofysische en spectrale eigenschappen voor tweekleuren-STED met behulp van een enkele depletielaser (hier 775 nm). Gebruik één STED-depletiegolflengte voor beide fluoroforen om intrinsieke chromatische uitlijning te waarborgen en de noodzaak voor chromatische verschuivingscorrectie te elimineren door beide kanalen met hetzelfde STED-depletiepatroon te definiëren.
- Veelvoorkomende fluorofoorparen zijn onder meer STAR RED/STAR635P en ATTO 647N/ATTO 643, in combinatie met Alexa Fluor 594, STAR 580 of STAR ORANGE18,19Hier werd de algemeen aanvaarde combinatie van Alexa Fluor 594 en STAR635P gebruikt. Hoewel hun emissiespectra gedeeltelijk overlappen, worden de fluoroforen verworven in regel-voor-regelmodus met een smal detectievenster voor Alexa Fluor 594 om crosstalk te minimaliseren (zie Tabel 1). Aangezien dit de detectie-efficiëntie van Alexa Fluor 594 vermindert, moet de helderste immunostaining aan dit kanaal worden toegewezen.
Resultaten
Om geschikte beeldvormingscondities vast te stellen voor 3D STED-nanoscopie in vleugelimaginale schijven, hebben we eerst een standaard immunofluorescentiekleuring uitgevoerd van Wg en het aan het apicale membraan geassocieerde eiwit Dlp. Wg werd gedetecteerd met Alexa Fluor 594, terwijl Dlp werd gelabeld met STAR635P, twee fluorforen die compatibel zijn met STED-nanoscopie (Figuur 3). Beelden werden verkregen zonder STED-depletie om beelden van confocale kwaliteit te verkrijgen, en met STED-depletie voor superresolutie-beeldvorming met gebruik van de instellingen beschreven in stap 2.3 (Figuur 3).
Een directe vergelijking van hetzelfde weefselgebied, gefotografeerd onder confocale en STED-condities als xz-doorsneden, toonde de aanzienlijke toename in ruimtelijke resolutie aan die wordt geboden door 3D STED-nanoscopie (Figuur 3A–D′). Structuren die in confocale beelden verschenen als langwerpige signalen (Figuur 3A,A′, en Figuur C,C′) werden in STED-modus opgelost in meerdere afzonderlijke puncta (Figuur 3B,B′, en Figuur D,D′). Deze verbetering werd waargenomen in zowel de Alexa Fluor 594- als de STAR635P-kanalen en werd gebruikt om de kleurings- en beeldgevingsparameters te optimaliseren om de hoogst mogelijke signaalkwaliteit en isotrope resolutie in intact wing disc-weefsel te bereiken.
Vervolgens hebben we de Wg-opnametest15 gecombineerd met farmacologische inhibitie om het transport van Wg bij het apicale membraan en de recycling ervan via clathrine-afhankelijke endocytose te onderzoeken. We gebruikten een vliegenlijn met endogeen getagd Wg::GFP20, waardoor detectie van extracellulair Wg::GFP met anti-GFP-antilichamen mogelijk was, terwijl de compatibiliteit met aanvullende antilichamen afkomstig van muizen behouden bleef.
Vleugel-imaginale schijven werden behandeld met Dynasore 2-24, een dynamine-remmer die gericht is op clathrine- en dynamine-afhankelijke endocytose21,22, en vervolgens onderworpen aan de Wg-opname-assay. Extracellulair Wg::GFP werd gelabeld met anti-GFP-antilichamen om de internalisatie te monitoren, terwijl anti-Dlg1-kleuring werd gebruikt om de weefselmorfologie te visualiseren. Wg werd gedetecteerd met Alexa Fluor 594 en afgebeeld in STED-modus, terwijl Dlg1 werd gelabeld met STAR635P (Figuur 4). Met DMSO behandelde controleschijven vertoonden progressieve internalisatie van Wg::GFP gedurende de opname-assay, waarbij het geëndocyteerde signaal werd gedetecteerd tot een diepte van ongeveer 14 µm (Figuur 4A,A′). Het experiment werd onafhankelijk tweemaal herhaald volgens de protocollen beschreven in secties 1 en 2 (Figuur 4B,C). In het eerste replica hief behandeling met 5 µM Dynasore2-24 de Wg-opname volledig op (n = 4; Figuur 4B,B′). In het tweede replica was de Wg-internalisatie verminderd maar niet geëlimineerd (n = 4; Figuur 4C,C′), waarbij de maximale penetratiediepte afnam tot ongeveer 5 µm.
Dergelijke variabiliteit wordt vaak waargenomen bij experimenten met farmacologische inhibitie en weerspiegelt waarschijnlijk verschillen in de effectiviteit of timing van de inhibitor. Onvolledige inhibitie, beperkte weefselpenetratie van de inhibitor, herstel van endocytose tijdens de assay, of vertragingen veroorzaakt door de zuurwassing en fixatiestappen kunnen allemaal bijdragen aan residuele Wg-internalisatie. Desondanks lieten beide experimenten consequent een duidelijke afname zien in Wg-opname en penetratiediepte vergeleken met de DMSO-controles, wat wijst op een succesvolle inhibitie van endocytose. Deze bevindingen benadrukken tevens dat een nauwkeurige timing gedurende het hele protocol essentieel is voor reproduceerbare resultaten.
Residueel membraangeassocieerd signaal na zuurstripping werd af en toe waargenomen en vertegenwoordigt waarschijnlijk Wg::GFP-moleculen die al vroege endocytische putjes waren binnengekomen en daarom onbereikbaar waren voor verwijdering door antilichamen23,24,25.
Samen tonen deze experimenten aan dat de combinatie van de Wg-opnameassay met farmacologische perturbatie en 3D STED-nanoscopie visualisatie van membraantransportdynamiek in intacte vleugel-imaginale schijven mogelijk maakt. Daarnaast identificeren ze belangrijke parameters voor een succesvolle implementatie van het protocol, waaronder geschikte fluorofoor- en antilichaambinaties, geoptimaliseerde inhibitorbehandeling, strikte timing van de opnameassay en onmiddellijk monteren van de monsters voorafgaand aan de beeldvorming.
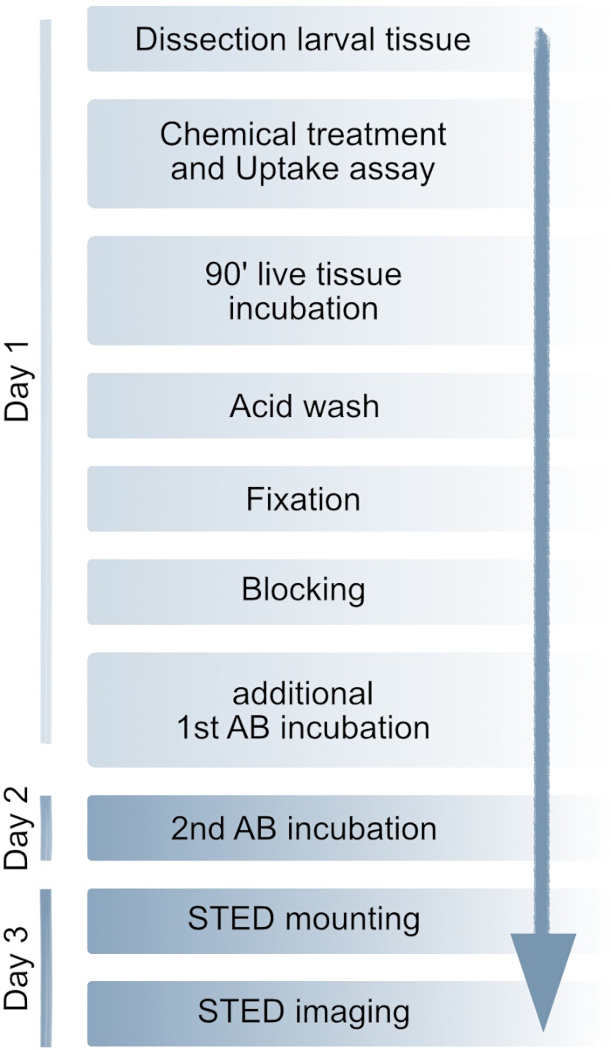
Figuur 1: Workflow van de methode. Het volledige protocol kan binnen 3 dagen worden voltooid. Optioneel kan de incubatie met het secundaire antilichaam op dezelfde dag worden uitgevoerd. Gedetailleerde procedures worden beschreven in de sectie Protocol. AB: antilichaam. Klik hier om een grotere versie van deze figuur te bekijken.
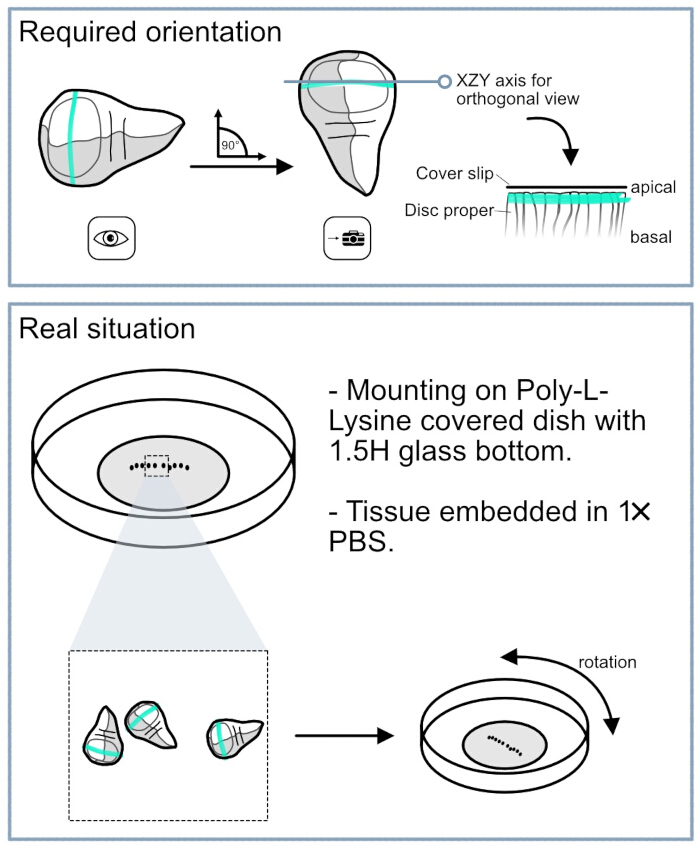
Figuur 2: Uitdagingen bij het mounten van Drosophila-vleugelschijven voor 3D STED. In het bovenste paneel wordt de vereiste oriëntatie van de vleugelschijven geïllustreerd. Voor de analyse van Wg-secreterende cellen is het essentieel dat de DV-grens perfect verticaal is uitgelijnd in het oculairbeeld. Deze uitlijning maakt het mogelijk om het camerabeeld naar het orthogonale vlak te roteren, waardoor de gewenste celpopulatie nauwkeurig kan worden getarget. Het onderste paneel toont de praktische opstelling die is gebruikt voor het hanteren van de vleugelschijven tijdens de beeldvorming. De vleugelschijven werden gemonteerd in ronde Petrischalen met een 1.5H glazen dekglasbodem. Het oppervlak van het dekglas werd gecoat met poly-L-lysine om de hechting van het weefsel te vergemakkelijken. Het ronde ontwerp van de schaal maakt rotatie binnen de microscophouder mogelijk, wat een nauwkeurige verticale uitlijning van de DV-grens mogelijk maakt, zoals vereist voor de beeldvorming. Klik hier om een grotere versie van deze figuur te bekijken.
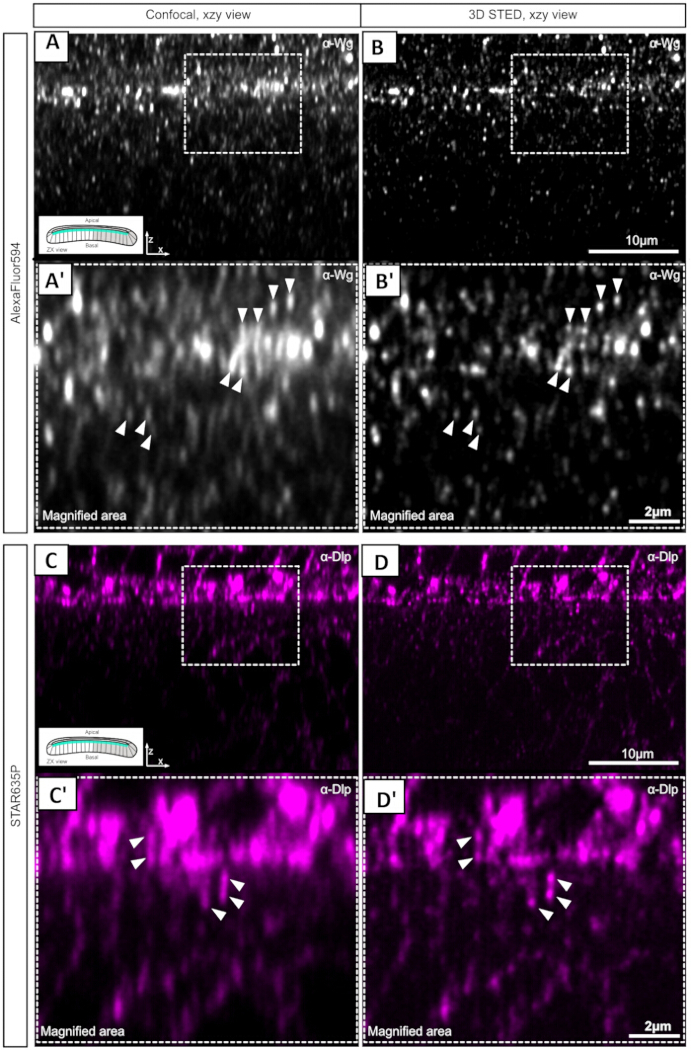
Figuur 3: Vergelijking van confocale en 3D STED-beeldvorming bij de DV-grens van Drosophila vleugelschijven. (A) Confocale afbeelding van Wg-secreterende cellen bij de DV-grens, weergegeven in het XZ-vlak. Anti-Wg kleuring werd gedetecteerd met Alexa Fluor 594. (A’) Vergroting van het aangegeven gebied met langgerekte signalen (pijltjes) in het apicale membraangebied. (B,B’) Hetzelfde gebied vastgelegd door 3D STED-nanoscopie. Het Alexa Fluor 594-signaal wordt getoond. Vergeleken met confocale beeldvorming lost 3D STED de langgerekte signalen op in duidelijke puncta en onthult het meerdere individuele signalen (pijltjes). (C) Confocale afbeelding van het STAR635P-kanaal van hetzelfde specimen als getoond in A en B. Als voorbeeld werd Dlp gedetecteerd met een STAR635P-geconjugeerd secundair antilichaam, waarbij het apicale membraan wordt geaccentueerd. (C’) Vergroting die langgerekte signalen in de confocale afbeelding laat zien. (D) 3D STED-afbeelding van hetzelfde gebied als getoond in C. (D’) Vergroting die aantoont dat de brede, langgerekte signalen waargenomen met confocale microscopie door 3D STED-beeldvorming worden opgelost in duidelijke puncta. Klik hier om een grotere versie van deze figuur te bekijken.
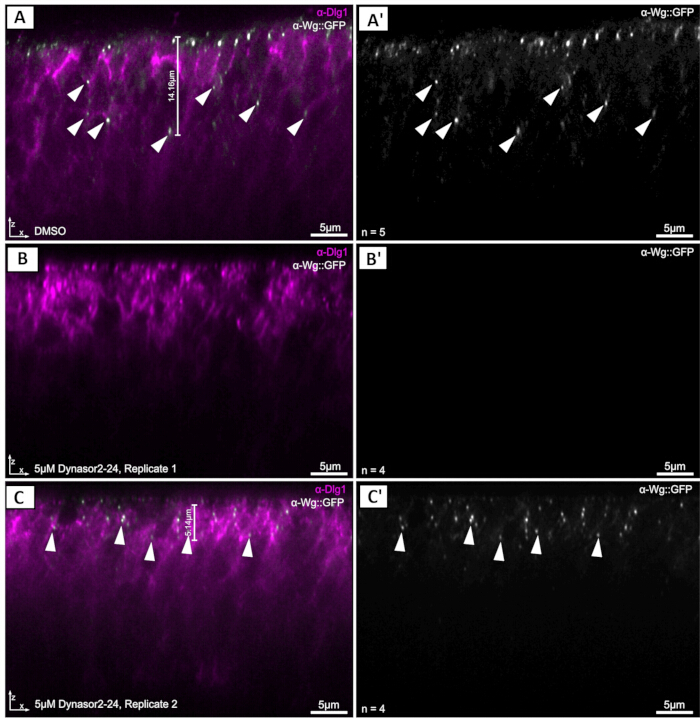
Figuur 4: Combinatie van chemische inhibitie met de Wg-opname-assay in Drosophila vleugelimaginale schijven gevisualiseerd via 3D STED. (A,A’) Representatieve DMSO-behandelde controleschijf (n = 5). Extracellulair Wg::GFP (grijs) is efficiënt gelabeld, en geïnternaliseerd Wg::GFP wordt intracellulair gedetecteerd (pijlpuntjes). Dlg1 (magenta) markeert de weefselmorfologie en de apicale regio van de eigenlijke schijf. (B,B’) Representatief monster uit replica 1 behandeld met 5 µM Dynasore2-24 om clathrine- en dynamine-afhankelijke endocytose te inhiberen (n = 4). Het Wg::GFP-signaal is verdwenen na de opname-assay. (C,C’) Representatief monster uit replica 2 behandeld met 5 µM Dynasore2-24 (n = 4). Residu Wg::GFP-signaal blijft detecteerbaar nabij het apicale oppervlak (pijlpuntjes), maar het intracellulaire signaal is beperkt tot de eerste ongeveer 5 µm van het weefsel, vergeleken met ongeveer 14 µm in DMSO-behandelde controles (meetbalken in A en C). Dlg1 (magenta) dient als morfologische referentie. Klik hier om een grotere versie van deze figuur te bekijken.
| Instellingen | Alexa Fluor 594-kanaal | STAR635P-kanaal |
| Doelstelling | 86x/1,2 HC PL APO CS2 (water) | 86x/1,2 HC PL APO CS2 (water) |
| Pixelgrootte | 37 nm × 37 nm | 37 nm × 37 nm |
| Inzoomen | 1.2 | 1.2 |
| Detectievenster | 3072 × 1536 pixels | 3072 × 1536 pixels |
| Lijngemiddelde | 1 | 1 |
| Lijnaccumulatie | 16 | 16 |
| Scansnelheid | 100–200 | 100–200 |
| Pinholegrootte | 70 μm | 70 μm |
| Excitatielaserlijn | 580 nm | 638 nm |
| Intensiteit van de excitatielaserlijn | 4%–10% (afhankelijk van het monster) | 8%–10% (afhankelijk van het monster) |
| Detector | HyD X2, 595–625 nm | HyD X4, 650–740 nm |
| Tau-gating excitatielaser | 0,5–8 ns | 0,5–8 ns |
| Depletielaserlijn | 775 nm | 775 nm |
| Vermogen van de uitputtingslaser | 65-75% (afhankelijk van het monster) | 65-75% (afhankelijk van het monster) |
| Beeldbewerking op basis van levensduur (τ-STED) | τ-Sterkte: 10 | τ-Sterkte: 10 |
| τ-Achtergrondonderdrukking: actief | τ-Achtergrondonderdrukking: actief | |
| Afvlakking: 0 | Afvlakking: 0 |
Tabel 1: Gedetailleerde microscoopinstellingen voor fluoroforen bij een STELLARIS SP8-microscoop. We hebben de door ons gebruikte instellingen voor de fluoroforen Alexa Fluor 594 en Star635P vermeld.
Discussie
De visualisatie van membraantransport en signaleringsdynamiek binnen intacte weefsels blijft technisch uitdagend, met name in sterk gepolariseerde epitheelcellen zoals die in de imaginale schijf van de Drosophila-vleugel worden aangetroffen. De smalle, kolomvormige morfologie van deze cellen beperkt de informatie die verkregen kan worden met conventionele confocale microscopie, vooral bij het analyseren van de eiwitlokalisatie langs de apicaal-basale as. In dit protocol hebben we deze beperkingen aangepakt door 3D STED11,12 nanoscopie te combineren met antilichaam-gebaseerde opname-assays en farmacologische perturbaties. Samen maken deze benaderingen de visualisatie mogelijk van dynamische eiwittransportprocessen binnen hun natuurlijke weefselomgeving met een ruimtelijke resolutie die niet haalbaar is met standaard confocale beeldvorming.
Een belangrijk voordeel van de workflow is het gebruik van 3D STED-nanoscopie om membraangeassocieerde processen in volledige weefsels te onderzoeken. Een directe vergelijking tussen confocale en STED-beeldvorming toonde aan dat langgerekte signalen waargenomen met confocale microscopie konden worden opgelost in afzonderlijke puncta door middel van 3D STED-beeldvorming (Figuur 3), wat de visualisatie van eiwitten aan het apicale membraan aanzienlijk verbeterde. Deze verhoogde resolutie is bijzonder waardevol voor het analyseren van secretie, endocytose en intracellulaire transportroutes, waarbij de nauwkeurige lokalisatie van individuele blaasjes en membraangeassocieerde eiwitcomplexen essentieel is. Bovendien maakt de mogelijkheid om orthogonale aanzichten te verkrijgen het mogelijk om de eiwitorganisatie en het transport langs de apicaal-basale as van epitheelcellen te onderzoeken.
De integratie van farmacologische perturbaties met de opname-assay breidt de experimentele mogelijkheden van de methode verder uit. Terwijl de opname-assay selectief eiwitten labelt die secretie en daaropvolgende re-internalisatie hebben ondergaan binnen een gedefinieerd tijdsbestek, maken farmacologische behandelingen de perturbatie van specifieke transportroutes mogelijk. De combinatie van deze benaderingen biedt daarom direct inzicht in hoe cellulaire processen de dynamiek van eiwittransport in vivo beïnvloeden. Zoals aangetoond, resulteerde de visualisatie van opgenomen Wg::GFP onder inhibitie van clathrine-afhankelijke endocytose in een verlies van het geïnternaliseerde signaal van het gelabelde eiwit bij het apicale membraan en/of een afname van het intracellulaire opnamesignaal, wat illustreert hoe de workflow kan worden gebruikt om transportmechanismen binnen hun fysiologische weefselcontext te onderzoeken. In bredere zin vult deze benadering klassieke genetische strategieën aan en versterkt het verder het nut van Drosophila als modelorganisme voor mechanistische studies van signaleringspaden.
Verschillende factoren zijn cruciaal voor de succesvolle uitvoering van het protocol. Ten eerste is de keuze van de primaire antilichamen essentieel, aangezien een robuuste en specifieke labeling vereist is voor een betrouwbare signaaldetectie. De beperkte beschikbaarheid van gevalideerde antilichamen tegen endogene Drosophila-eiwitten blijft echter een belangrijke beperking. In dit protocol maakte dit het gebruik van een endogeen getagde Wg::GFP-lijn noodzakelijk, omdat veel veelgebruikte Drosophila-antilichamen in muizen zijn opgewekt, wat multiplex immunolabeling beperkt. Hoewel fluorescerende kleurstoffen een alternatief kunnen bieden voor het labelen van cellulaire structuren zoals membranen, mitochondriën of andere organellen, zijn de meeste commercieel beschikbare kleurstoffen geoptimaliseerd voor gekweekte cellen en zijn ze moeilijk efficiënt toe te passen op intact Drosophila-weefsel.
Daarnaast moeten secundaire antilichamen en fluoroforen zorgvuldig worden geëvalueerd op compatibiliteit met STED-nanoscopie, aangezien niet alle fluoroforen voldoende signaalintensiteit, fotostabiliteit of depletie-efficiëntie bieden onder STED-beeldvormingscondities19,26. De hier gepresenteerde resultaten benadrukken verder het belang van monstervoorbereiding en weefselverwerking. Op dezelfde manier moeten farmacologische behandelingen zorgvuldig worden geoptimaliseerd, aangezien overmatige drugconcentraties de weefselintegriteit kunnen aantasten en beeldvormingsartefacten kunnen genereren die biologische signalen maskeren. Een nauwkeurige weefseloriëntatie is evenzeer belangrijk, aangezien een precieze uitlijning van de dorsoventrale grens vereist is om orthogonale weergaven te verkrijgen en de gewenste celpopulaties reproduceerbaar in beeld te brengen (Figuur 2).
Er kunnen verschillende aanpassingen worden doorgevoerd om de workflow af te stemmen op uiteenlopende experimentele vereisten: De duur van de opname-assay kan worden aangepast om een balans te vinden tussen voldoende eiwitlabeling en het behoud van de weefselintegriteit. Evenzo kunnen remmerconcentraties titratie vereisen, afhankelijk van het weefseltype, het ontwikkelingsstadium of de onderzochte signaleringsroute. Het protocol is bovendien compatibel met diverse kleuringsmethoden, waaronder standaard immunofluorescentie, extracellulaire immunofluorescentie en fluorofoor-gebaseerde labelingsstrategieën, mits de gekozen fluoroforen geschikt zijn voor STED-nanoscopie. Hoewel de huidige workflow zich richt op tweekleurige beeldvorming, zouden aanvullende fluoroforen en beeldconfiguraties de toepasbaarheid verder kunnen uitbreiden.
Hoewel dit protocol is ontwikkeld met gebruik van imaginale schijven van de Drosophila-vleugel en het Wg/Wnt-signaleringspad als modelsysteem, is de benadering niet beperkt tot deze toepassingen. De workflow kan gemakkelijk worden aangepast aan andere Drosophila-weefsels en is waarschijnlijk overdraagbaar naar andere insectmodellen met vergelijkbare weefselafmetingen en optische eigenschappen. In algemene zin biedt de combinatie van opname-assays, farmacologische perturbaties en 3D STED-nanoscopie een veelzijdig kader voor het onderzoeken van membraanorganisatie, eiwittransport, secretie en signaleringsdynamiek in vivo. Deze mogelijkheid is waarschijnlijk waardevol, niet alleen voor fundamentele studies naar ontwikkelingsgebonden signaleringspaden, maar ook voor biomedisch onderzoek gericht op het begrijpen van transportdefecten geassocieerd met ziekten. Door directe visualisatie van dynamische eiwitpopulaties op subcellulaire resolutie binnen intacte weefsels mogelijk te maken, biedt de methode een krachtig platform voor het bestuderen van de cellulaire mechanismen die de signalering in complexe biologische systemen reguleren.
Openbaarmakingen
De auteurs verklaren dat er geen concurrerende belangen zijn.
Dankbetuigingen
M.B. en M.H. worden ondersteund door het Collaborative Research Center CRC/SFB1324 (projectnummer 331351713) van de Deutsche Forschungsgemeinschaft over mechanismen en functies van Wnt-signalering. Wij willen de DKFZ lichtmicroscopie core facility (LMCF) bedanken voor hun expertise en ondersteuning.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0,2 mL PCR-reactiebuisjes | Biozym | 711068 | |
| 1,5 mL reactiebuisje | Sarstedt | 72.706.700 | |
| 1,5H glazen dekglasbodem van μ-Dish, 35 mm | Ibidi | #81158 | |
| 1,5H ronde (12 mm) dekglazen | Marienfeld | none | |
| 12-well glazen kleurplaat | Marienfeld | CET6.20 | |
| 37% Formaldehyde | Merck | F8775 | |
| anti-dlg1 | DSHB | 4F3 | |
| anti-dlp | DSHB | 13G8 | |
| anti-GFP | Invitrogen | A11122 | |
| anti-muis Alexa Fluor 594 | Invitrogen | A21201 | |
| anti-muis STAR635P | Abberior | ST635P-1001 | |
| anti-konijn Alexa Fluor 594 | Invitrogen | A11012 | |
| anti-konijn STAR635P | Abberior | ST635P-1002 | |
| anti-Wg | DSHB | 4D4 | |
| Blu Tack | Bostik | 30811745 | Drukgestuurde kleefstof |
| DMSO | VWR | SIAL472301 | |
| Dumont 5 pincet | Dumaont | No. 5 | |
| Dynasor2-24 | MCE | HY-13863 | |
| FBS | Sigma-Aldrich | F7524 | |
| Glycine | Gerbu | 10.231.000 | |
| Leica Stellaris 8 STED Falcon-microscoop | Leica Microsystems | N/A | |
| Nagellak | essence | N/A | |
| Normaal geitenserum | Cell Signalling | 5425S | |
| Objectief: HC PL APO 86x/1,20 W motCORR STED wit objectief | Leica Microsystems | N/A | |
| PBS Tabletten | Life technologies | 18912014 | |
| Photo Flo | Kodak | N/A | |
| Poly-L-Lysine | Sigma-Aldrich | P1524 | |
| Schneider's insectmedium | Sigma | S0146 | |
| Triton-X100 | Sigma-Aldrich | T9284 |
Referenties
- Giansanti MG, Frappaolo A, Piergentili R. Drosophila melanogaster: How and why it became a model organism. Int J Mol Sci. 2025;26(15):7485.
- Tolwinski NS. Introduction: Drosophila—A model system for developmental biology. J Dev Biol. 2017;5(3):9.
- Perrimon N, Pitsouli C, Shilo BZ. Signaling mechanisms controlling cell fate and embryonic patterning. Cold Spring Harb Perspect Biol. 2012;4(8):a005975.
- Grobe K, Guerrero I. Dally-like is unlike Dally in assisting Wingless spread. Dev Cell. 2020;54(5):572-573.
- Han C, Yan D, Belenkaya TY, Lin X. Drosophila glypicans Dally and Dally-like shape the extracellular Wingless morphogen gradient in the wing disc. Development. 2005;132(4):667-679.
- Khare N, Baumgartner S. Dally-like protein, a new Drosophila glypican with expression overlapping with wingless. Mech Dev. 2000;99(1):199-202.
- McGough IJ, et al. Glypicans shield the Wnt lipid moiety to enable signalling at a distance. Nature. 2020;585(7823):85-90.
- Beckett K, et al. Drosophila S2 cells secrete wingless on exosome-like vesicles but the wingless gradient forms independently of exosomes. Traffic. 2013;14(1):82-96.
- Gross JC. Extracellular WNTs: Trafficking, exosomes, and ligand–receptor interaction. Handb Exp Pharmacol. 2021;269:29-43.
- Gross JC, Chaudhary V, Bartscherer K, Boutros M. Active Wnt proteins are secreted on exosomes. Nat Cell Biol. 2012;14(10):1036-1045.
- Eggeling C, Willig KI, Sahl SJ, Hell SW. Lens-based fluorescence nanoscopy. Q Rev Biophys. 2015;48(2):178-243.
- Sahl SJ, Hell SW, Jakobs S. Fluorescence nanoscopy in cell biology. Nat Rev Mol Cell Biol. 2017;18(11):685-701.
- Wu Z, Xu X, Xi P. Stimulated emission depletion microscopy for biological imaging in four dimensions: A review. Microsc Res Tech. 2021;84(9):1947-1958.
- Jiang N, et al. Superresolution imaging of Drosophila tissues using expansion microscopy. Mol Biol Cell. 2018;29(12):1413-1421.
- Witte L, Linnemannstöns K, Honemann-Capito M, Gross JC. Visualization and quantitation of Wg trafficking in the Drosophila wing imaginal epithelium. Bio Protoc. 2021;11(11):e4040.
- Zimmermann T. Setting up a light microscopy core facility: Facility design. J Microsc. 2024;294(3):255-267.
- Hell SW. Microscopy and its focal switch. Nat Methods. 2009;6(1):24-32.
- Bückers J, et al. Simultaneous multi-lifetime multi-color STED imaging for colocalization analyses. Opt Express. 2011;19(4):3130-3143.
- Jeong S, Widengren J, Lee JC. Fluorescent probes for STED optical nanoscopy. Nanomaterials (Basel). 2022;12(1):21.
- Port F, Chen HM, Lee T, Bullock SL. Optimized CRISPR/Cas tools for efficient germline and somatic genome engineering in Drosophila. Proc Natl Acad Sci U S A. 2014;111(29):E2967-E2976.
- Preta G, Cronin JG, Sheldon IM. Dynasore - not just a dynamin inhibitor. Cell Commun Signal. 2015;13(1):24.
- Yamada H, et al. Dynasore, a dynamin inhibitor, suppresses lamellipodia formation and cancer cell invasion by destabilizing actin filaments. Biochem Biophys Res Commun. 2009;390(4):1142-1148.
- Brunt L, Scholpp S. The function of endocytosis in Wnt signaling. Cell Mol Life Sci. 2018;75(5):785-795.
- Fabrowski P, et al. Tubular endocytosis drives remodelling of the apical surface during epithelial morphogenesis in Drosophila. Nat Commun. 2013;4(1):2244.
- Fischer JA, Eun SH, Doolan BT. Endocytosis, endosome trafficking, and the regulation of Drosophila development. Annu Rev Cell Dev Biol. 2006;22:181-206.
- Klar TA, et al. Fluorescence microscopy with diffraction resolution barrier broken by stimulated emission. Proc Natl Acad Sci U S A. 2000;97(15):8206-8210.