Deze studie introduceert een vereenvoudigd multicellulair in vitro bloed-tumorbarrière (BTB) model dat Transwell co-cultuur combineert met 3D tumorsferoïden, waardoor een fysiologisch relevant platform ontstaat voor het bestuderen van borstkankerhersenmetastasen en het screenen van doelgerichte therapieën.
Methodenartikel
Een protocol op basis van celkweek-inserts voor het construeren van een vereenvoudigd multicellulair in vitro bloed-tumorbarrièremodel van borstkankerhersenmetastasen
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Effectieve behandelingen voor hersenmetastasen bij borstkanker (BCBM) blijven beperkt, grotendeels omdat de bloed-tumorbarrière (BTB) de toegang van veel chemotherapeutische en doelgerichte middelen tot metastatische laesies in het centrale zenuwstelsel belemmert. Om geselecteerde kenmerken van deze complexe micro-omgeving in vitro te modelleren, presenteert deze studie een gestandaardiseerd protocol voor de constructie van een vereenvoudigd cellulair driedimensionaal BTB-model. De methode bestaat uit drie kernstappen. Ten eerste wordt er een bloed-hersenbarrière (BBB)-compartiment geconstrueerd met behulp van celkweekinserts met een poriegrootte van 0,4 μm. Humane hersenmicrovasculaire endotheelcellen (HBMECs) worden gezaaid op de basale zijde van het poreuze membraan, en 1 dag later worden humane astrocyten (HA) en humane microgliale HMC3-cellen (HMC3) gezaaid op de apicale zijde. Met SK-BR-3-cellen als voorbeeld worden borstkankercellen gekweekt via de hanging-drop-methode om na 3 dagen kweek uniforme, regelmatig gevormde 3D-tumorsferoïden te vormen. De sferoïden worden vervolgens overgebracht naar de apicale zijde van een poreus membraan gecoat met een basaalmembraanmatrix, wat zorgt voor fysieke scheiding terwijl chemische communicatie tussen de barrièrecellen en tumorsferoïden tijdens co-kweek mogelijk blijft. Dit platform maakt een nauwkeurige controle van de experimentele tijdlijn mogelijk en produceert astrocytaire morfologische en markerveranderingen die consistent zijn met een peritumorale reactieve respons, terwijl de integriteit van de endotheelbarrière en de paracellulaire permeabiliteit kunnen worden beoordeeld.
Inleiding
Hersenmetastasen zijn een veelvoorkomende complicatie in de late stadia van diverse maligne solide tumoren, waaronder borstkanker en longkanker1,2. De prognose is uiterst slecht en de behandelingsopties zijn beperkt1,2. In het gezonde centrale zenuwstelsel is de bloed-hersenbarrière (BBB) een hooggespecialiseerde en dynamische interface, primair gevormd door nauw verbonden microvasculaire endotheelcellen van de hersenen, terwijl de integriteit en functie worden ondersteund door het vasculaire basaalmembraan en gecoördineerde interacties met pericyten, astrocyten, neuronen, microglia, cellen van de oligodendrocytenlijn en andere componenten van de neurovasculaire eenheid3. Via tight junctions tussen endotheelcellen en met hulp van perifere gliacellen beperkt deze barrière strikt de toegang van exogene stoffen tot het centrale zenuwstelsel4. Zodra borstkankercellen zijn verspreid en zich in de hersenen hebben genesteld, breiden de hersenmetastasen zich uit, neemt lokale hypoxie toe, intensiveren ontstekingstekenen en vindt er remodeling van de neurovasculaire eenheid (NVU) plaats, waarbij geleidelijk de bloed-tumorbarrière (BTB) wordt gereconstrueerd5. Hoewel de lokale permeabiliteit van de BTB hoger is dan die van de BBB, leiden verschillen in permeabiliteit voor moleculen van verschillende grootte, samen met een ongelijkmatige doorbloeding, tot een slechte drugaccumulatie in hersentumoren6. Daarom zijn het begrijpen van de biologie van de BTB en het ontwikkelen van afleveringsstrategieën die deze barrière kunnen passeren belangrijke prioriteiten geworden in de neuro-oncologie.
Tot op heden zijn de kenmerken en transformatiemechanismen van de BTB slechts gedeeltelijk beschreven, en effectieve medicijnopties voor hersenmetastasen bij borstkanker (BCBM) blijven in de klinische praktijk beperkt. Eén uitdaging is de beperkte beschikbaarheid van klinische monsters afgeleid van hersenmetastasen, samen met de beperkte beschikbaarheid en onvolledige functionele karakterisering van bestaande BTB-modellen. In vivo diermodellen, in het bijzonder muismodellen7,8, worden nog steeds veelvuldig gebruikt in BTB-onderzoek. Deze modellen hebben echter beperkingen, waaronder soortverschillen, een lage doorvoersnelheid en uitdagingen bij standaardisatie en reproduceerbaarheid, wat mechanistische studies en geneesmiddelenontwikkeling kan belemmeren9,10. Daarnaast maken huidige in vitro BTB-modellen gewoonlijk gebruik van co-culturen van tumorcellen en barrière-geassocieerde cellen in celcultuur-insertsystemen of microfluïdische chips.
Deze bestaande modellen missen vaak de driedimensionale structuur van tumoren en zijn daarom beperkt in het reproduceren van ruimtelijke kenmerken die relevant zijn voor hersenmetastasen, waaronder cel-dichtheidsgradiënten, hypoxische/necrotische regio's, beperkte moleculaire diffusie en een heterogene cellulaire distributie11,12. Om een gedefinieerde driedimensionale tumorcomponent te introduceren, hebben we een sferoïdenmodel gebruikt dat eenvoudig, reproduceerbaar en compatibel is met screeningstoepassingen. Op basis hiervan hebben we een vereenvoudigd multicellular humaan in vitro BBB-compartiment ontwikkeld en dit geïntegreerd met tumorsferoïden om een vereenvoudigd BTB-model te construeren (Figuur 1A) dat geselecteerde structurele en cellulaire kenmerken van de micro-omgeving van hersenmetastasen vastlegt. Het model is eenvoudig te bedienen, ondersteunt kwantitatieve barrièremetingen en maakt visualisatie mogelijk van ruimtelijke veranderingen in tumor-geassocieerde astrocytaire en microgliale populaties.
Dit protocol beschrijft de kritische stappen van celpreparatie en zaaien tot de generatie van tumorsferoïden, het aanbrengen van een basement membrane matrix overlay, de preparatie van een passende controle en de overdracht van sferoïden, waarmee een gestandaardiseerde workflow wordt geboden voor het construeren van dit vereenvoudigde BTB-model.
Protocol
Deze studie is uitgevoerd in overeenstemming met de beginselen van de Verklaring van Helsinki en is goedgekeurd door de ethische commissie van het Second Hospital of Dalian Medical University (goedkeuringsnummer JW2026-019-01). Alle patiëntgegevens zijn vóór de analyse geanonimiseerd. De in dit protocol gebruikte onderzoeksmiddelen staan vermeld in de Tabel met materialen.
1. Voorbereiding van het bloed-hersenbarrière (BBB) model
- Algemene vereisten
- Voer alle handelingen uit in een steriele laminaire flowkast en volg strikt de aseptische techniek.
- Gebruik 12-wells celkweek-inserts met PET-membranen met een poriegrootte van 0,4 µm en een effectief membraanoppervlak van 1,12 cm2.
- Coating met collageen type I
- Voeg 1–2 mL collageen type I-coatingoplossing toe aan elke kweekfles of -schaal en verdeel deze gelijkmatig over het bodemoppervlak.
- Voeg respectievelijk 200 µL en 800 µL coatingoplossing toe aan de apicale en basale zijden van elke celkweek-insert. Schud de plaat voorzichtig om volledig contact met het membraan te garanderen, terwijl luchtbellen onder het membraan worden vermeden.
- Incubeer de gecoate vaten en inserts gedurende 1 u bij 37 °C met 5% CO₂. Verwijder de coatingoplossing en was tweemaal met PBS.
- Bewaar de gecoate flessen, schalen en celkweek-inserts bij 37 °C met 5% CO₂ en gebruik ze binnen 3 dagen. Spoel vlak voor gebruik eenmaal met PBS.
- Coat HBMEC- en HA-kweekvaten met collageen type I vóór de celkweek. HMC3-RFP-cellen behoeven geen coating met collageen type I.
- Bereiding van de collageen type I-coatingoplossing
- Los 60 µL geconcentreerd azijnzuur op in 50 mL ultrapuur water en koel de oplossing tot 4 °C.
WAARSCHUWING: Geconcentreerd azijnzuur is corrosief. Hanteer dit in een chemische zuigkast met het gebruik van geschikte persoonlijke beschermingsmiddelen, waaronder handschoenen, een laboratoriumjas en oogbescherming. Voer azijnzuurafval af volgens de institutionele procedures voor chemisch afval. - Filtreer de oplossing door een spuitfilter van 0,22 µm, voeg 500 µL collageen type I (9,45 mg/mL) toe, meng grondig en bewaar bij 4 °C tot gebruik.
- Los 60 µL geconcentreerd azijnzuur op in 50 mL ultrapuur water en koel de oplossing tot 4 °C.
- Celvoorbereiding
- Kweek HBMEC-, HA- en HMC3-RFP-cellen tot ze een confluentie van 80%–90% bereiken vóór gebruik.
WAARSCHUWING: Van mensen afgeleide cellijnen en materialen geassocieerd met menselijk weefsel moeten worden behandeld als potentieel biologisch gevaarlijk. Volg de institutionele biosafety-procedures en draag geschikte persoonlijke beschermingsmiddelen. Voer besmette kweekmaterialen af als biologisch gevaarlijk afval.
- Kweek HBMEC-, HA- en HMC3-RFP-cellen tot ze een confluentie van 80%–90% bereiken vóór gebruik.
- Uitplaten van HBMEC's op Dag 0
- Detacheer HBMEC's met behulp van recombinant trypsine-achtig protease (1×), centrifugeer de cellen en resuspendeer de pellet om een enkelcel-suspensie te verkrijgen.
- Bepaal de celdichtheid en pas de suspensie aan zodat 120 µL 1,5 × 10⁵ HBMEC's bevat voor elke celkweek-insert.
- Keer de plaat om en breng 120 µL van de HBMEC-suspensie aan op de basale zijde van het poreuze membraan. Vermijd de vorming van luchtbellen tijdens het uitplaten (Figuur 1B).
- Dek de wells af, houd de 12-wells plaat omgekeerd en incubeer gedurende 6 u.
- Zet de plaat terug in de rechtopstaande positie, voeg respectievelijk 200 µL en 800 µL ECM-volledig kweekmedium toe aan de bovenste en onderste kamers en zet de incubatie voort.
- Uitplaten van HA- en HMC3-RFP-cellen op Dag 1
- Detacheer HA-cellen met recombinant trypsine-achtig protease (1×) en HMC3-RFP-cellen met 0,25% trypsine-EDTA. Centrifugeer en resuspendeer de twee celtypen afzonderlijk.
- Bepaal de celdichtheden en combineer 2,0 × 10⁵ HA-cellen met 4,0 × 10³ HMC3-RFP-cellen voor elke celkweek-insert.
- Centrifugeer de gemengde cellen, verwijder het supernatant en resuspendeer de pellet in 200 µL gemengd volledig medium (AM-volledig medium: MEM-volledig medium = 5:1). Voeg de 200 µL suspensie gelijkmatig toe aan de bovenste kamer, terwijl luchtbellen worden vermeden (Figuur 1B).
- Voeg 800 µL ECM-volledig kweekmedium toe aan de onderste kamer, bewaar de plaat rechtopstaand in de incubator en verschoon het medium dagelijks.
2. Bereiding van driedimensionale tumorsferoïden
- Voorbereiding van SK-BR-3-cellen
- Kweek de SK-BR-3-cellen tot ze een confluentie van 80%–90% bereiken voordat u overgaat tot de vorming van sferoïden.
- Los de SK-BR-3-cellen los met 0,25% trypsine-EDTA, centrifugeer de cellen en resuspendeer het pellet om een enkelcellesuspensie te verkrijgen.
- Bepaal de celdichtheid en pas de suspensie aan zodat elke druppel van 30 µL 2 × 10⁴ cellen bevat.
- Vorming van hangende druppels
- Keer een cellentkweekschaal van 10 cm om en breng druppels van 30 µL van de celsuspensie aan op het deksel van de schaal. Plaats ongeveer 20 druppels op elk deksel.
- Plaats de bodem van de schaal terug en keer de geassembleerde schaal snel om (Figuur 1B). Bereid de druppels opnieuw voor als ze van het deksel druppelen of hun vorm verliezen.
- Sferoïdenkweek
- Voeg 5 mL PBS toe aan de schaal en plaats deze in de incubator. Verstoor de schaal niet tijdens de eerste 2 dagen van de kweek.
- Voeg voor langdurige kweek elke 2 dagen 10 µL volledig kweekmedium toe aan elke druppel.
- Voeg het medium met de pipetpunt toe aan de rand van elke druppel en vermijd contact met de tumorsferoïden.
3. Voorbereiding van het vereenvoudigde model van de bloed-tumorbarrière (BTB)
- Voorbereiding van materialen
- Coat de benodigde celkweekvaten en celkweekinserts (PET-membraan, poriegrootte 0,4 µm) met collageen type I en bewaar deze in de incubator tot gebruik.
- Knip de uiteinden van 200 µL pipetpunten af met een schaar en steriliseer de gemodificeerde punten door autoclaveren.
- Vestiging van het model
- Dag 0–1: Constructeer het BBB-model en bereid de tumorsferoïden voor zoals hierboven beschreven.
- Dag 2: Ontdooi de basaalmembraanmatrix op ijs. Verwijder het kweekmedium uit beide kamers en was beide kamers met PBS.
- Voeg 800 µL ECM compleet medium toe aan de onderste kamer en 30 µL ontdooide basaalmembraanmatrix aan de bovenste kamer. Verdeel de basaalmembraanmatrix gelijkmatig over het poreuze membraan.
- Incubeer de plaat bij 37 °C gedurende 20 min, voeg vervolgens langzaam 200 µL gemengd compleet medium (AM:MEM = 5:1) toe langs de zijwand van de bovenste kamer. Plaats de plaat terug in de incubator (Figuur 1B).
- Houd de basaalmembraanmatrix op ijs en werk snel. Gebruik een vooraf gekoelde pipetpunt bij het aspireren van de basaalmembraanmatrix.
- Gematched sferoïde-vrije/basaalmembraanmatrix controle
- Bereid controle-inserts voor met hetzelfde volume basaalmembraanmatrix (30 µL), dezelfde mediumsamenstelling, wasstappen, incubatietijden en dagelijkse schema voor mediumverversing als bij de BTB-conditie, maar laat de overdracht van tumorsferoïden op Dag 3 achterwege. Zo verschilt de gematchte controle van de BTB-conditie door de aanwezigheid of afwezigheid van tumorsferoïden, en niet door blootstelling aan of behandeling van de basaalmembraanmatrix.
- Overdracht van tumorsferoïden op Dag 3
- Inspecteer de tumorsferoïden onder een rechtopstaande microscoop en bevestig dat ze een regelmatige vorm hebben en compacte sferoïden hebben gevormd.
- Aspireer de tumorsferoïden in 1,5 mL microcentrifugebuisjes met een afgeknipte pipetpunt en was ze tweemaal met PBS. Behandel de sferoïden voorzichtig om disruptie te voorkomen.
- Vervang het medium in de onderste kamer en verwijder het kweekmedium uit de bovenste kamer.
- Hanteer vijf tumorsferoïden naar elke bovenste kamer met behulp van een afgeknipte pipetpunt.
- Voeg 200 µL gemengd compleet kweekmedium (AM:MEM = 5:1) toe aan de bovenste kamer en schud de plaat voorzichtig om te voorkomen dat sferoïden elkaar raken of samensmelten (Figuur 1B).
- Bewaar de plaat in de incubator en verschangel het medium dagelijks.
- Monstername
- Verzamel monsters op Dag 7 voor daaropvolgende experimenten, of pas het tijdstip van monstername aan volgens de experimentele vereisten.
4. Meting van de transendotheliale elektrische weerstand (TEER)
- Voorbereiding van de elektroden
- Laad de TEER-meter volledig op en dompel de chopstick-elektroden gedurende 15 min onder in 75% ethanol.
WAARSCHUWING: Ethanol is brandbaar. Houd 75% ethanol uit de buurt van open vlammen, vonken en andere ontstekingsbronnen, en hanteer het in overeenstemming met de institutionele procedures voor chemische veiligheid. - Stel de biosafety cabinet gedurende 30 min bloot aan ultraviolet licht voor sterilisatie. Stel de elektroden niet rechtstreeks bloot aan ultraviolette bestraling.
- Verwijder de elektroden uit de ethanol, laat ze 15 min equilibreren in PBS en droog ze onder steriele omstandigheden.
- Laad de TEER-meter volledig op en dompel de chopstick-elektroden gedurende 15 min onder in 75% ethanol.
- Equilibratie van celkweek-inserts
- Haal de 12-wells plaat met de celkweek-inserts uit de incubator en laat deze 15 min op kamertemperatuur staan vóór de meting.
- Weerstandsmeting
- Bereid een celvrije blanco celkweek-insert voor met respectievelijk 200 µL en 800 µL van hetzelfde volledige kweekmedium in de bovenste en onderste kamers.
- Plaats de chopstick-elektroden voorzichtig langs de rand van de celkweek-insert zonder het poreuze membraan of de bodem van de well aan te raken.
- Spoel de elektroden met PBS en droog ze. Meet elke insert met cellen volgens dezelfde procedure en noteer de weerstand als R₍measured₎.
- TEER-berekening
- Bereken de transendotheliale elektrische weerstand (TEER) met behulp van de volgende formule13:
TEER (Ω·cm²) = (R(measured) − R(blank) × S (1.1) - R(measured) is de weerstand over het poreuze membraan met de cellaag (Ω); R(blank) is de weerstand over een celvrij poreus membraan (Ω); en S is het effectieve membraanoppervlak (cm2). Het effectieve membraanoppervlak dat in deze studie is gebruikt, bedraagt 1,12 cm2.
- Bereken de transendotheliale elektrische weerstand (TEER) met behulp van de volgende formule13:
5. FITC-dextran parcellulaire permeabiliteitsassay (apicaal-naar-basale richting)
- Bereiding van FITC-dextran
- Bereid vóór het experiment een werkoplossing van 2 mg/mL FITC-dextran (4 kDa) en bescherm deze tegen licht.
- Interpretatie van de meetrichting
- Interpreteer de huidige assay als een readout voor de integriteit van de paracellulaire barrière van apicaal naar basaal, aangezien HBMECs aan de basale zijde van het membraan zijn gehecht, terwijl astrocyten, microglia en tumorsferoïden zich in het apicale compartiment bevinden.
OPMERKING: Voor studies die bedoeld zijn om systemische blootstelling na te bootsen, dient FITC-dextran of een testverbinding in het onderste/basale compartiment aan de endotheelzijde te worden gebracht, waarna monsters uit het bovenste/apicale compartiment worden verzameld met behulp van een afzonderlijk gevalideerd bemonsteringsschema en Papp-berekening.
- Interpreteer de huidige assay als een readout voor de integriteit van de paracellulaire barrière van apicaal naar basaal, aangezien HBMECs aan de basale zijde van het membraan zijn gehecht, terwijl astrocyten, microglia en tumorsferoïden zich in het apicale compartiment bevinden.
- Wassen en equilibratie
- Verwijder al het kweekmedium uit beide kamers. Voeg respectievelijk 400 µL en 1 mL voorverwarmd glucosevrij DMEM-basaalmedium toe aan de bovenste en onderste kamers, was voorzichtig één keer en verwijder het medium.
- Voeg respectievelijk 400 µL en 1 mL vers voorverwarmd glucosevrij DMEM-basaalmedium toe aan de bovenste en onderste kamers. Equilibreer 15 min bij 37 °C met 5% CO₂ en aspireer vervolgens alle vloeistof.
- Permeabiliteitsmeting
- Voeg 200 µL van de 2 mg/mL FITC-dextran werkoplossing toe aan de apicale zijde en 800 µL glucosevrij DMEM-basaalmedium aan de onderste kamer. Incubeer 30 min in het donker bij 37 °C met 5% CO₂.
- Neem na 30 min 100 µL medium op uit de onderste kamer van elke experimentele insert. Overbreng drie aliquoten van elke insert naar een zwarte 96-wells plaat en bescherm deze tegen licht.
- Bereiding van de FITC-dextran standaardcurve
- Bereid FITC-dextran standaarden van 0, 0,5, 1,0 en 1,5 mg/mL. Voeg 100 µL van elke standaard in triplicaat toe aan een zwarte 96-wells plaat en bescherm de plaat tegen licht.
- Fluorescentiemeting en Papp-berekening
- Meet de fluorescentie-intensiteit met een multifunctionele microplate-lezer bij een excitatiegolflengte van 492 nm en een emissiegolflengte van 520 nm. Registreer de gegevens en bereken de schijnbare permeabiliteitscoëfficiënt (Papp) met behulp van de volgende vergelijkingen14.
- Pas eerst een lineaire regressie toe op de concentraties van de FITC-dextran standaardoplossingen (C) tegenover de overeenkomstige fluorescentie-intensiteiten (A) om een standaardcurve te genereren:
A = kC + b (1.2) - Hierbij vertegenwoordigt k de helling van de standaardcurve en b het snijpunt met de as.
- Substitueer vervolgens de fluorescentie-intensiteit van het monster (At) gemeten op tijdstip t in de vergelijking van de standaardcurve om de FITC-dextran concentratie (Ca) aan de basolaterale zijde op tijdstip t te verkrijgen. Substitueer vervolgens Ca in de volgende formule om Papp (cm/s) te berekenen:
- Papp = (Ca × Va)/(t × S × C0) (1.3)
- Hier is Va het totale basolaterale volume (mL); t is de permeatietijd (s); S is het effectieve oppervlak van het poreuze membraan (cm2); en C₀ is de initiële concentratie aan de apicale zijde.
6. Immunofluorescentiekleuring
- Fixatie, wassen en permeabilisatie
- Verwijder al het kweekmedium uit de celkweekinserts, was twee keer met PBS en aspireer alle resterende vloeistof.
- Voeg respectievelijk 200 µL en 800 µL 4% paraformaldehyde toe aan de bovenste en onderste kamers en fixeer de cellen gedurende de nacht bij 4 °C.
WAARSCHUWING: Paraformaldehyde is gevaarlijk en moet worden gehanteerd in een gecertificeerde chemische zuurkast met het dragen van handschoenen, een laboratoriumjas en oogbescherming. Verzamel paraformaldehyde-afval apart en voer dit af volgens de institutionele procedures voor gevaarlijk afval. - Verwijder de paraformaldehyde en voeg respectievelijk 200 µL en 800 µL PBS toe aan de bovenste en onderste kamers. Was drie keer gedurende elk 5 min op een schudapparaat.
- Voeg respectievelijk 200 µL en 800 µL 0,5% niet-ionisch surfactant toe aan de bovenste en onderste kamers en permeabiliseer gedurende 10 min bij kamertemperatuur.
- Verwijder de niet-ionische surfactantoplossing en was drie keer gedurende elk 5 min met PBS.
- Excisie en blokkeren van het membraan
- Keer de celkweekinserts om op het deksel van een celkweekschaal, exciseer de poreuze membranen voorzichtig langs de rand met een scalpel en breng ze over naar een 24-wells plaat.
- Voeg 200 µL 3% BSA in PBS toe om elk membraan te bedekken en blokkeer gedurende 90 min bij kamertemperatuur. Indien nodig kunnen de membranen in kleinere stukjes worden gesneden voor afzonderlijke kleuring.
- Incubatie van het primaire antilichaam
- Verdun de primaire antilichamen met standaard antilichaamverdunner en voeg voldoende oplossing toe om elk membraan volledig te bedekken.
- Voeg ultrapuur water toe aan de omliggende lege wells om verdamping te verminderen en incubeer de monsters gedurende de nacht bij 4 °C. Gebruik monsters zonder specifiek primair antilichaam als negatieve controles.
- Verwijder de volgende dag de primaire antilichaamoplossing en was de membranen drie keer gedurende elk 10 min met 1 mL PBS op een schudapparaat.
- Secundair antilichaam en DAPI-kleuring
- Verdun de secundaire antilichamen met fluorescentie-antilichaamverdunner onder lichtbeschermde omstandigheden, bedek de membranen volledig en incubeer gedurende 90 min bij kamertemperatuur. Was drie keer gedurende elk 10 min met PBS terwijl de monsters tegen licht zijn beschermd.
- Voeg een gebruiksklare DAPI-kleuringsoplossing toe om de membranen te bedekken en incubeer gedurende 15 min bij kamertemperatuur. Was drie keer gedurende elk 10 min met PBS terwijl de monsters tegen licht zijn beschermd.
- Clearing, montage en imaging
- Voeg een passend volume 3D celkweek-clearingreagens toe om de membranen te bedekken en incubeer gedurende 15 min bij kamertemperatuur onder lichtbeschermde omstandigheden.
- Breng de membranen met een oogheelkundige pincet over naar glazen objectglazen, voeg antifade montagemedium toe en monteer de monsters onder lichtbeschermde omstandigheden. Observeer en beeld de monsters af met behulp van een confocale laser-scanning microscoop.
7. Statistische rapportage
- Voor de functionele vergelijkingen staat n = 3 voor drie onafhankelijke biologische replica's per conditie, waarbij elke biologische replica als experimentele eenheid is beschouwd. Individuele datapunten voor alle drie de biologische replica's. Gegevens worden weergegeven als gemiddelde ± SD. Voer vergelijkingen uit met twee-zijdige ongepaarde Student's t-toetsen, met exacte t- en p-waarden.
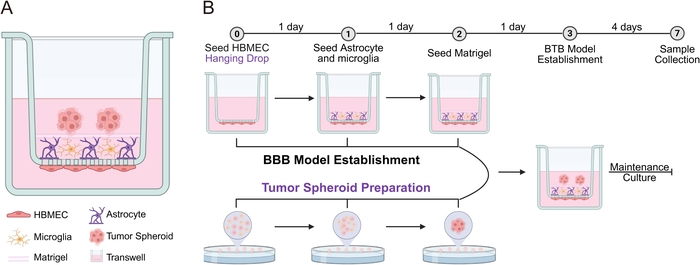
Figuur 1: Schematische illustratie en constructieworkflow van het BTB-model. (A) HBMEC's werden gezaaid op de basale zijde van het poreuze celkweekinsert-membraan, terwijl HA-cellen en HMC3-RFP-cellen op de apicale zijde werden verdeeld. Een laag basaalmembraanmatrix werd gebruikt om de tumorsferoïden te scheiden van het barrièrecelcompartiment. Voor de bijbehorende sferoïde-vrije controle werden dezelfde basaalmembraanmatrix-overlay en handelingen gebruikt, maar de tumorsferoïden werden weggelaten. (B) De omcirkelde getallen bovenaan geven de overeenkomstige culturedagen aan. De constructie van de BBB en de preparatie van de tumorsferoïden werden gelijktijdig uitgevoerd. Nadat een laag basaalmembraanmatrix op het bovenste oppervlak van het celkweekinsert was aangebracht, werden de tumorsferoïden met een afgeknotte pipetpunt in de bovenste kamer overgebracht. Het BTB-model werd vervolgens tot 1 week in cultuur gehouden vóór de monstername. Monsters kunnen normaal gesproken op dag 7 worden verzameld voor daaropvolgende experimenten. Klik hier om een grotere versie van deze figuur te bekijken.
Resultaten
In de gepaarde spheroid-vrije BBB-controle, overdekt met dezelfde hoeveelheid basismembrixmatrix, waren de HMC3-RFP-signalen relatief breed verdeeld over de apicale cellaag (Figuur 2). In de BTB-conditie toonden de eindpuntbeelden HMC3-RFP-signalen voornamelijk in gebieden die niet bedekt werden door tumorsferoïden, met verminderd signaal onder de sferoïden en in direct aangrenzende gebieden (Figuur 2). Deze gegevens tonen een ruimtelijke associatie aan tussen de aanwezigheid van tumorsferoïden en de eindverdeling van HMC3-RFP-cellen. Aangezien de basissnelheid van HMC3-RFP-verdeling vóór de introductie van sferoïden en een longitudinale celvolging niet zijn beoordeeld, kunnen de huidige gegevens geen actieve microgliale migratie, afstoting of door de tumor veroorzaakte uitsluiting aantonen.
Astrocyten toonden ook verschillen in markersignaal en morfologie in de BTB-conditie (Figuur 2). In vergelijking met de gepaarde controle zonder sferoïden/basismembranmatrix toonden representatieve afbeeldingen een sterkere GFAP-fluorescentie in zowel de peri-sferoïde als de distale gebieden. Astrocyten aan de sferoïde rand vertoonden vergrote cellichamen, dikkere en verlengde uitlopers, en uitlopers die gericht waren naar de rand van de sferoïde (Figuur 2). Deze eindpunten zijn consistent met een reactieve astrocyt-achtig fenotype, maar bevestigen op zichzelf geen specifiek reactief astrogliose-programma noch het onderliggende mechanisme. Morfologisch vergelijkbare peritumorale astrocytaire structuren werden waargenomen in weefselsneden van menselijke breinmetastasen van borstkanker, waar immunofluorescentiekleuring kenmerken toonde die consistent waren met peritumorale reactieve astrogliose (Figuur 3A). Om AQP4-geassocieerde astrocytaire kenmerken verder te karakteriseren, werd AQP4-immunofluorescentiekleuring uitgevoerd in het overeenkomstige sferoïde-vrije BBB-model en in de distale en peri-sferoïde gebieden van het BTB-model (Figuur 3B). Vertegenwoordigende afbeeldingen van het BBB-model, de distale regio van het BTB-model en de peri-sferoïde regio grenzend aan de tumorsferoïden zijn weergegeven in respectievelijk de eerste, tweede en derde rij (Figuur 3B). Binnen het BTB-model vertoonden peri-sferoïde astrocyten morfologische verschillen in vergelijking met distale astrocyten. Samengevat ondersteunen de GFAP/AQP4- en morfologische observaties tumor-sferoïde-geassocieerde herschikking van astrocyten binnen dit model; de overeenkomst met weefsel van patiënten dient te worden geïnterpreteerd als fenotypische gelijkenis, en niet als bewijs dat het model volledig de humaan peritumorale astrogliose reproduceert.
Om de met tumor-sferoïden geassocieerde veranderingen in de endotheliale junctionele organisatie te beoordelen, voerden we immunofluorescentiekleuring uit van het tight-junction-eiwit ZO-1 in de basale HBMEC-laag van de vereenvoudigde BBB- en BTB-modellen, met gebruik van gekoppelde, sferoïde-vrije en sferoïde-bevattende condities die bedekt waren met gelijke hoeveelheden basale membranematrix. Confocale beeldvorming richtte zich op het gebied dat overeenkomt met de tumor-sferoïden (Figuur 4A). In de gekoppelde controle zonder sferoïden toonden de ZO-1-signalen tussen HBMEC's een relatief continue, lineaire verdeling met duidelijk afgebakende intercellulaire grenzen. In de BTB-conditie verscheen de ZO-1-fluorescentie in gebieden corresponderend met tumorsferoïden spaarzamer, met focale onderbrekingen en discontinuïteit (Figuur 4A). Deze eindbeeldjes zijn consistent met een lokale verlies van tight-junction-organisatie. Zonder aanvullende BTB-specifieke moleculaire markeringen of mechanistische experimenten met verstoringen, kunnen de huidige gegevens echter geen onderscheid maken tussen specifieke BTB-hermodellering en niet-specifieke, tumor-geassocieerde endotheliale schade of barrièrestoornis.
Op functioneel niveau werden op dag 7 TEER-metingen en FITC-dextrans doorlaatbaarheidsassays gelijktijdig uitgevoerd in de gekoppelde sfeeroïde-vrije/basismembranmatrijscontrole en de sfeeroïde-bevattende BTB-conditie (Figuur 4B). De individuele waarden van alle drie onafhankelijke biologische replicaten worden weergegeven als puntenwolk in Figuur 4B, waarbij de samenvattende gegevens worden gepresenteerd als gemiddelde ± SD. De TEER-waarde van de BTB-conditie (106,0 ± 9.5255 Ω·cm2, n = 3 onafhankelijke biologische replicaten) was lager dan die van de gepaarde controle (168,0 ± 5.1325 Ω·cm2, n = 3 onafhankelijke biologische replicaten). In overeenstemming daarmee was de gemeten apparente permeabiliteitscoëfficiënt (Papp) in de apicaal-naar-basale FITC-dextran-assay hoger in de BTB-conditie (5,851 ± 1.2080 × 10⁻3 cm/s, n = 3 onafhankelijke biologische replicaten) dan in de bijbehorende controle (2,656 ± 1.0937 × 10⁻3 cm/s, n = 3 onafhankelijke biologische replicaten). Tweezijdige ongepaarde Student’s t-toetsen toonden statistisch significante verschillen [TEER: t(4) = 9,920, p = 0,0006; Papp: t(4) = 3,395, p = 0.0274] (Figuur 4B). Binnen deze experimentele opstelling tonen de gecombineerde afname van elektrische weerstand en toename van FITC-dextran-permeabiliteit een verlaagde barrièrintegriteit in aanwezigheid van tumorsferoïden aan. Deze metingen alleen bewijzen nog geen specifiek BBB-naar-BTB-hermodelleringsmechanisme, en de apicaal-naar-basale FITC-dextran-test mag niet worden geïnterpreteerd als een fysiologisch experiment naar bloed-naar-tumor drugafgifte.
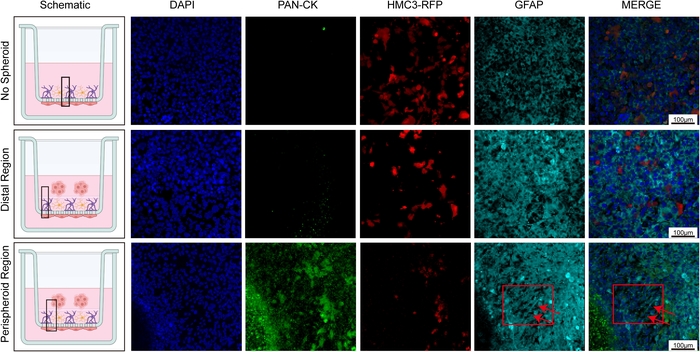
Figuur 2Immunofluorescentiekleuring in het BTB-model. Representatieve immunofluorescentieafbeeldingen van Pan-CK en GFAP-kleuring in de apicale cellagen van het overeenkomstige sferoïde-vrije BBB-controle- en BTB-model, beide bedekt met gelijke hoeveelheden basallamina-matrix, met tevens het HMC3-RFP-signaal. De eerste kolom toont schematische illustraties, waarbij het zwarte vierkant het zichtgebied voor confocale afbeelding aangeeft. De eerste rij toont de overeenkomstige controle zonder sferoïde (Geen sferoïde); de tweede rij toont gebieden die distaal liggen ten opzichte van de tumoursferoïdes in het BTB-model (Distale regio); en de derde rij toont gebieden naast de tumoursferoïdes in het BTB-model (Peri-sferoïde regio). Pijlen geven gebieden aan met astrocitaire morfologische kenmerken die consistent zijn met een reactief fenotype. Celkernen werden tegengekleurd met DAPI (blauw), tumourcellen werden gelabeld met pan-cytokeratine (Pan-CK; groen), RFP-exprimerende microglia worden weergegeven in rood, en GFAP-kleuring wordt weergegeven in cyaan. Schaalbalk = 100 µm. Klik hier om een grotere versie van deze afbeelding te bekijken.
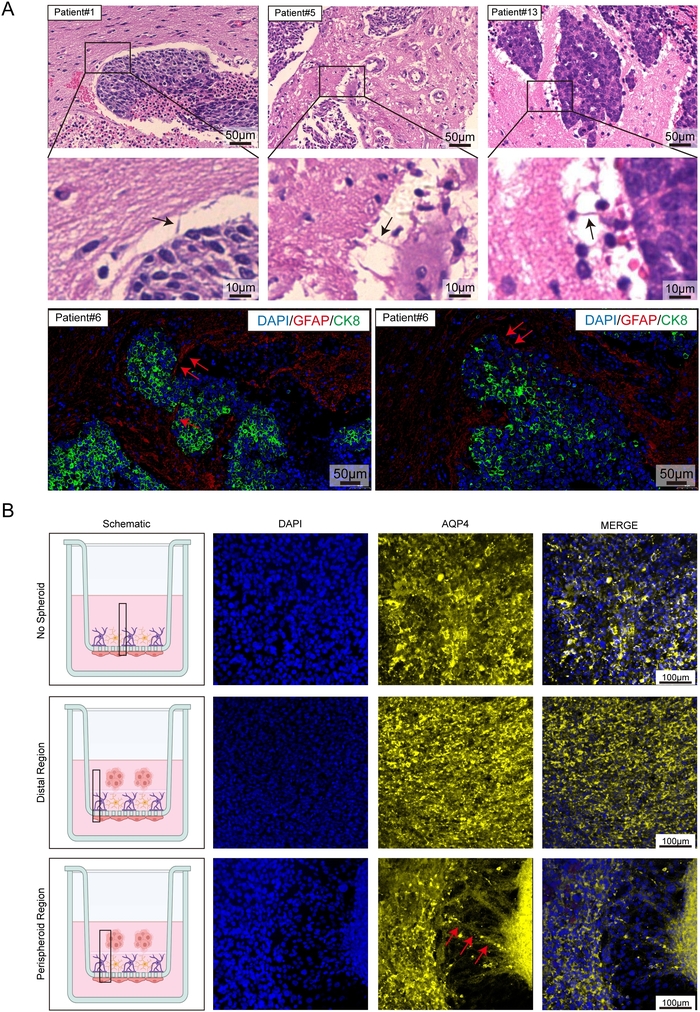
Figuur 3: Immunofluorescentekleuring onthult morfologische kenmerken die consistent zijn met peritumorale reactieve astrogliose in het BTB-model. (A) Secties van hersenweefsel van patiënten met hersenmetastasen van borstkanker werden onderworpen aan H&E-vlek. Astrocytaire structuren aan de grens tussen tumorgeweef en hersenparenchym of bloedvaten vertoonden morfologische kenmerken die consistent zijn met peritumorale reactieve astrogliose. Zwarte pijlen geven representatieve gebieden aan. Immunofluorescentievlekking toonde bovendien astrocytaire morfologische kenmerken die consistent zijn met een reactief fenotype; de rode pijl markeert een representatief gebied. Schaalbalken: 50 µm voor de H&E-gekleurde afbeeldingen in de eerste rij, 10 µm voor de H&E-gekleurde afbeeldingen in de tweede rij, en 50 µm voor de immunofluorescentiebeelden in de derde rij. (B) AQP4-immuunfluorescentiekleuring werd uitgevoerd in het overeenkomstige sferoïde-vrije BBB-model en in de distale en peri-sferoïde gebieden van het BTB-model. De eerste rij toont representatieve afbeeldingen van het BBB-model, de tweede rij toont representatieve afbeeldingen van het distale gebied van het BTB-model, en de derde rij toont representatieve afbeeldingen van het peri-sferoïde gebied grenzend aan de tumorsferoïden. Pijlen geven astrocytaire morfologische veranderingen aan in het peri-sferoïde gebied. Kernen werden gekleurd met DAPI en worden in blauw weergegeven, terwijl AQP4 in geel wordt weergegeven. Schaalbalk = 100 µm. Klik hier om een grotere versie van deze afbeelding te bekijken.
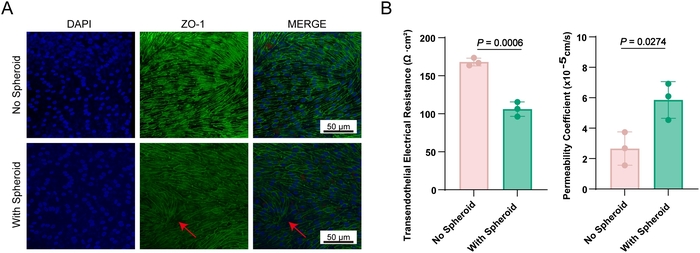
Figuur 4Functionele karakterisering van het BTB-model. (A) Immunofluorescente kleuring van ZO-1 in de basale endotheliale cel-laag van de BBB- en BTB-modellen, bedekt met een gelijke hoeveelheid basismembranematrix. In de eerste kolom zijn schematische diagrammen weergegeven, waarbij zwarte kaders de geselecteerde gebieden voor confocale afbeelding aangeven. De eerste rij toont representatieve afbeeldingen van de basale cel-laag in het BBB-model zonder tumorsferoïden (Geen sferoïde), en de tweede rij toont representatieve afbeeldingen van de basale cel-laag in het BTB-model met tumorsferoïden (Met sferoïde). De rode pijl markeert een gebied met spaarzame ZO-1-fluorescentie en focale onderbrekingen. Kernen zijn gekleurd met DAPI en weergegeven in blauw, terwijl ZO-1 in groen is weergegeven. Schaalbalk = 50 µm. (B) TEER-waarden en schijnbare permeabiliteitscoëfficiënten (Papp) van FITC-dextran (4 kDa) van de overeenkomstige sferoïde-vrije BBB-controle (Geen sferoïde) en de BTB-conditie (Met sferoïde), beide bedekt met een gelijke hoeveelheid basismembranematrix. n = 3 onafhankelijke biologische replicaten per conditie. Individuele datapunten voor alle drie biologische replicaten worden weergegeven, en samenvattende gegevens zijn gepresenteerd als gemiddelde ± SD. FITC-dextran Papp-waarden werden verkregen in apicaal-naar-basaal richting. Klik hier om een grotere versie van deze afbeelding te bekijken.
Discussie
Er werd gebruikgemaakt van een sferoïdemodel om een driedimensionaal tumorcomponent te introduceren dat ruimtelijke organisatie en diffusiebeperkingen biedt die niet worden gereproduceerd in conventionele tweedimensionale tumorcelkweken. De eenvoud en reproduceerbaarheid maken het bovendien geschikt voor screeninggeoriënteerde workflows. De sferoïden werden gecombineerd met een driecellig menselijk barrièrecompartiment bestaande uit hersenmicrovasculaire endotheelcellen, astrocyten en microglia om een vereenvoudigd multicellular menselijk in vitro BTB-model te construeren. Het systeem is eenvoudig te bedienen, compatibel met multi-well kweken en kwantitatieve barrièremetingen (Figuur 1), en maakt visualisatie van de celmorfologie en ruimtelijke distributie mogelijk via immunofluorescentiekleuring. De waargenomen GFAP/AQP4-geassocieerde astrocytische veranderingen en hun morfologische gelijkenis met peritumorale astrocyten in weefsel van borstkankerhersenmetastasen ondersteunen de relevantie van het model voor het bestuderen van geselecteerde tumor-glia-endotheelinteracties5, hoewel deze bevindingen geen equivalentie met de volledige menselijke BTB vaststellen.
De hanging-drop methode werd gebruikt om tumorsferoïden te genereren, welke werden gecocultuurd met humane cerebrale microvasculaire endotheelcellen, humane astrocyten en humane microglia om een vereenvoudigd multicellulair humaan in vitro BTB-platform te vestigen. Onder de geteste omstandigheden waren tumorsferoïden geassocieerd met een verminderde TEER, een verhoogde apicaal-naar-basale FITC-dextran permeabiliteit, een veranderde ZO-1 organisatie en veranderingen in astrocytaire markers en morfologie. TEER- en permeabiliteitsmetingen zijn gevestigde benaderingen voor het evalueren van de barrière-integriteit in in vitro barrièresystemen13,14. Deze bevindingen tonen barrièrebeschadiging geassocieerd met tumorsferoïden en gliale remodellering aan binnen dit gedefinieerde systeem. Dit BTB-platform realiseert echter geen volledige BBB-naar-BTB transformatie, actieve microgliale migratie of een specifiek moleculair mechanisme van BTB-remodellering. Het platform kan daarom het beste worden beschouwd als een hanteerbaar experimenteel model voor hypothesegeneratie en gecontroleerde studies naar tumor-glia-endotheel interacties, waarbij directioneel passende transportassays vereist zijn bij het modelleren van systemische geneesmiddelentoediening.
Dit vereenvoudigde model kent enkele belangrijke beperkingen. Ten eerste bevat het niet de volledige neurovasculaire eenheid of de micro-omgeving van de hersentumor. Pericyten, neuronen, een fysiologisch complete basaalmembraan/extracellulaire matrix en circulerende immuuncellen ontbreken. Pericyten zijn belangrijke regulatoren van de neurovasculaire en barrièrefunctie15,16,17, maar hun integratie in een gestandaardiseerd humaan in vitro model blijft uitdagend vanwege de beperkte beschikbaarheid en batch-tot-batch variabiliteit van primaire humane pericyten. Daarom moet dit model niet worden beschreven als een volledige humane BTB, maar eerder als een vereenvoudigd experimenteel platform. Ten tweede maakt de huidige studie gebruik van SK-BR-3 als enige borstkankercellijn. De waargenomen fenotypen kunnen daarom niet worden gegeneraliseerd naar de BCBM-biologie als geheel. Validatie met aanvullende borstkankersubtypen, hersentrope modellen en patiëntafgeleide BCBM-sferoïden of organoïden zal belangrijk zijn voor het vaststellen van de generaliseerbaarheid en de relevantie voor de patiënt. Ten derde zijn de huidige HMC3-RFP-gegevens eindpuntobservaties en is het daarmee niet duidelijk of het ruimtelijke patroon het resultaat is van actieve migratie, differentiële overleving of een reeds bestaande distributie. Longitudinale live-cell imaging zou nodig zijn om deze mogelijkheden te onderscheiden. Ten vierde stellen de ZO-1-, TEER- en FITC-dextran-gegevens een barrièrebeschadiging vast, maar maken ze geen onderscheid tussen BTB-specifieke remodellering en aspecifieke endotheliale beschadiging; aanvullende moleculaire karakterisering en mechanistische controles zijn vereist. Ten vijfde, omdat HBMEC's in deze configuratie op de basale zijde van het membraan worden gezaaid, is de gerapporteerde apicale-naar-basale FITC-dextran-assay een uitlezing van de barrière-integriteit en geen fysiologische bloed-naar-tumor transportassay. Studies naar systemische toediening zouden de tracer of het geneesmiddel in het onderste/basale endotheel-georiënteerde compartiment moeten introduceren en het transport naar het bovenste/apicale tumorcompartiment moeten valideren. Ten slotte waren de huidige functionele metingen gebaseerd op drie onafhankelijke biologische replica's per conditie. Hoewel dit ontwerp biologische replicatie onderscheidt van technische replicatie, zou het verhogen van het aantal onafhankelijke biologische replica's de beoordeling van de reproduceerbaarheid verder versterken. Het integreren van deze verfijningen, inclusief pericyten en patiëntafgeleid materiaal, zou de fysiologische en translationele relevantie van het platform progressief kunnen vergroten.
Openbaarmakingen
De auteurs hebben geen belangenconflicten om te melden.
Dankbetuigingen
Dit werk werd ondersteund door het Onderwijsreformeproject van de provincie Liaoning (JG24DB110), het Leven en Gezondheid Begeleidingsplanproject van Dalian (2025ZDJH01PT101), het 1+X-programma van het Tweede Ziekenhuis van de Dalian Medische Universiteit (2024LCJSYL07) en de Gemeenschappelijke Stichting van het Dalian Instituut voor Chemische Fysica, Chinese Academie van Wetenschappen, en de Dalian Medische Universiteit (DMU-2&DICP UN202509)
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 0,25% Trypsine-EDTA (1×) (losmaken van HMC3-RFP-cellen) | NCM Biotech | C100C1 | Gebruikt om HMC3-RFP-cellen los te maken tijdens de celpreparatie. |
| 1,5 mL centrifugebuisjes | Jet Biofil | CFT001015 | Gebruikt voor het verzamelen, wassen en hanteren van tumorsferoïden. |
| 12-wells celkweekplaat | Jet Biofil | TCP011012 | Gebruikt om 12-wells celkweekinserts vast te houden tijdens de constructie van het BBB/BTB-model. |
| 3D celkweek clearing reagens | Thermo Fisher | V11326 | Gebruikt om gekleurde celkweekmembranen te klaren vóór het monteren en confocale imaging. |
| Alexa Fluor 488-gelabeld anti-konijn secundair antilichaam | Proteintech | RGAR002 | Fluorescerend secundair antilichaam gebruikt voor immunofluorescentiedetectie van konijn primaire antilichamen. |
| Alexa Fluor 647-gelabeld anti-muis secundair antilichaam | Proteintech | RGAM005 | Fluorescerend secundair antilichaam gebruikt voor immunofluorescentiedetectie van muis primaire antilichamen. |
| Antilichaam verdunner | Solarbio | A1800 | Gebruikt om primaire antilichamen te verdunnen voor immunofluorescentiekleuring. |
| Anti-fade montage medium | Solarbio | S2100 | Gebruikt om gekleurde membranen te monteren en fluorescentie-fading tijdens imaging te verminderen. |
| Astrocyten groeisupplement (AGS) | ScienCell | 1852 | Supplement gebruikt voor de kweek van humane astrocyten. |
| Astrocyten medium (AM) | ScienCell | 1801 | Kweekmedium gebruikt voor humane astrocyten en als onderdeel van het gemengde medium voor de bovenkamer. |
| Celkweekschaal | Servicebio | CCD-100 | Gebruikt voor routinematige celkweek en de preparatie van tumorsferoïden via de hanging-drop methode. |
| Collageen Type I | Corning | 354249 | Gebruikt om kweekvaten en celkweekinserts te coaten vóór het uitzaaien van cellen. |
| Dekglasjes | Citotest | 10212450C | Gebruikt voor montage en microscopiepreparatie. |
| DAPI-kleuringsoplossing | Servicebio | G1012-10ML | Gebruikt voor tegenkleuring van de kern tijdens immunofluorescentiekleuring. |
| DMEM basis (1×) | Gibco | C11995500BT | Gebruikt als basaal medium in de FITC-dextran permeabiliteitsassay. |
| Endotheelcel groeisupplement (ECGS) | ScienCell | 1052 | Supplement gebruikt voor de kweek van humane cerebrale microvasculaire endotheelcellen. |
| Endotheelcel medium (ECM) | ScienCell | 1001 | Kweekmedium gebruikt voor HBMEC's en de onderste kamer van het BBB/BTB-model. |
| Foetaal kalfsserum (FBS) | Gibco | A5669701 | Serumsupplement gebruikt in complete celkweekmedia. |
| FITC-gelabeld Dextran (MW 4.000) | Beyotime | ST2930-50mg | Fluorescerende tracer gebruikt om paracellulaire permeabiliteit te beoordelen en Papp te berekenen. |
| Fluorescerende antilichaam verdunner | Solarbio | A1840 | Gebruikt om fluorescerende secundaire antilichamen te verdunnen voor immunofluorescentiekleuring. |
| Ijsazijn | Sigma | 27225 | Gebruikt voor het bereiden van de collageen type I coating-oplossing. |
| HA | Humane astrocyten | NA | Astrocytair component voor het beoordelen van tumor-geassocieerde morfologische reacties en markerresponsen |
| HBMEC | Humane cerebrale microvasculaire endotheelcellen | NA | Endotheliale barrièrecomponent van BBB/BTB |
| HMC3-RFP | RFP-gelabelde humane microgliale cellijn HMC3 | NA | Microgliaal component voor fluorescentie-tracking |
| Matrigel | Corning | 354230 | Basale membraanmatrix gebruikt als overlay om tumorsferoïden te scheiden van het barrièrecelcompartiment. |
| MEM (met NEAA) Compleet Medium (10) | Procell System | PM150410B | Medium gebruikt als onderdeel van het gemengde kweekmedium voor de bovenkamer. |
| Microscoopglaasjes | Citotest | 188105 | Gebruikt om uitgesneden gekleurde membranen te monteren voor confocale imaging. |
| Muis anti-human GFAP antilichaam | EMD Millipore | MAB360-25μL | Primair antilichaam gebruikt om GFAP in astrocyten te detecteren via immunofluorescentie. |
| Paraformaldehyde | Servicebio | G1101-500ML | Gebruikt om cellen te fixeren vóór immunofluorescentiekleuring. |
| PBS fosfaatgebufferde zoutoplossing poeder | Servicebio | G0002-2L | Gebruikt voor wassen, equilibratie en preparatiestappen gedurende het protocol. |
| Penicilline-streptomycine oplossing (P/S) | Servicebio | G4003-100ML | Antibioticasupplement gebruikt in complete celkweekmedia. |
| Pipet | Eppendorf | 3123000250 | Gebruikt voor vloeistofbehandeling tijdens de celkweek en assay-procedures. |
| Pipetpunten | MWM Bio | 800201 | Gebruikt voor routinematige vloeistofbehandeling; gemodificeerde cut-off punten worden gebruikt voor de overdracht van tumorsferoïden. |
| Konijn anti-human PAN-CK polyklonaal antilichaam | MedChemExpress | HY-P81164 | Primair antilichaam gebruikt om tumorcellen te identificeren via immunofluorescentie. |
| Konijn anti-human ZO-1 antilichaam | Proteintech | 21773-1-AP | Primair antilichaam gebruikt om de organisatie van endotheliale tight-junctions te beoordelen via immunofluorescentie. |
| SK-BR-3 | Humane borstkanker cellijn | NA | Tumorsferoïd component voor BTB-constructie |
| Tissue Culture Plate Insert (0,4 μm, PET-membraan), 12-wells platen | Jet Biofil | TCS016012 | Poreuze celkweekinsert gebruikt voor de constructie van het BBB/BTB co-kweekmodel. |
| Transepitheliale Elektrische Weerstand (TEER) Meter | Millicell | ERS-2 | Gebruikt om de elektrische weerstand over de celkweekinsert te meten als readout voor de barrière-integriteit. |
| TrypLE Express (1×) (losmaken van HBMEC's en HA-cellen) | Gibco | 12605-010 | Gebruikt om HBMEC's en HA-cellen los te maken tijdens de celpreparatie. |
Referenties
- Park M, et al. Breast cancer metastasis: mechanisms and therapeutic implications. Int J Mol Sci. 2022;23(12):6806. doi:10.3390/ijms23126806.
- Wang R, et al. The clinicopathological features and survival outcomes of patients with different metastatic sites in stage IV breast cancer. BMC Cancer. 2019;19(1):1091. doi:10.1186/s12885-019-6311-z.
- McConnell HL, Mishra A. Cells of the blood-brain barrier: an overview of the neurovascular unit in health and disease. Methods Mol Biol. 2022;2492:3–24.
- Dong X. Current strategies for brain drug delivery. Theranostics. 2018;8(6):1481–1493.
- Gril B, et al. Reactive astrocytic S1P3 signaling modulates the blood-tumor barrier in brain metastases. Nat Commun. 2018;9(1):2705. doi:10.1038/s41467-018-05030-w.
- Pitz MW, Desai A, Grossman SA, Blakeley JO. Tissue concentration of systemically administered antineoplastic agents in human brain tumors. J Neurooncol. 2011;104(3):629–638.
- Adkins CE, et al. Characterization of passive permeability at the blood-tumor barrier in five preclinical models of brain metastases of breast cancer. Clin Exp Metastasis. 2016;33(4):373–383.
- Lockman PR, et al. Heterogeneous blood-tumor barrier permeability determines drug efficacy in experimental brain metastases of breast cancer. Clin Cancer Res. 2010;16(23):5664–5678.
- Song H-T, et al. Rat model of metastatic breast cancer monitored by MRI at 3 tesla and bioluminescence imaging with histological correlation. J Transl Med. 2009;7:88. doi:10.1186/1479-5876-7-88.
- Miarka L, Valiente M. Animal models of brain metastasis. Neurooncol Adv. 2021;3(Suppl 5):v144–v156.
- Kim J-H, et al. Inflammatory mammary carcinoma with metastasis to the brain and distant organs in a spayed Shih Tzu dog. J Vet Diagn Invest. 2011;23(5):1079–1082.
- Wiese DA, Thaiwong T, Yuzbasiyan-Gurkan V, Kiupel M. Feline mammary basal-like adenocarcinomas: a potential model for human triple-negative breast cancer (TNBC) with basal-like subtype. BMC Cancer. 2013;13:403. doi:10.1186/1471-2407-13-403.
- Srinivasan B, et al. TEER measurement techniques for in vitro barrier model systems. J Lab Autom. 2015;20(2):107–126.
- Harding IC, et al. Developing a transwell millifluidic device for studying blood-brain barrier endothelium. Lab Chip. 2022;22(23):4603–4620.
- Liu X, et al. The role of neurovascular unit damage in the occurrence and development of Alzheimer’s disease. Rev Neurosci. 2019;30(5):477–484.
- Nikolakopoulou AM, et al. Pericyte loss leads to circulatory failure and pleiotrophin depletion causing neuron loss. Nat Neurosci. 2019;22(7):1089–1098.
- Bell RD, et al. Pericytes control key neurovascular functions and neuronal phenotype in the adult brain and during brain aging. Neuron. 2010;68(3):409–427.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar