Netwerkfarmacologie en moleculaire docking onthulden dat Rhizoma Drynariae werkt op meerdere targets en pathways om letsel aan de rotator cuff te verlichten via anti-inflammatoire, anti-apoptotische en pro-angiogene effecten.
Onderzoeksartikel
Netwerkfarmacologie en moleculaire docking onthullen het mechanisme van Rhizoma Drynariae tegen letsel aan de rotator cuff
In dit artikel
Samenvatting
Samenvatting
Letsels aan de rotator cuff (RCI) vormen een refractaire musculoskeletale aandoening die wordt gekenmerkt door chronische ontsteking, apoptose van tenocyten, een verminderde angiogenese en dysregulatie van de extracellulaire matrix (ECM), waarbij slechts beperkte klinische behandelingen beschikbaar zijn. In deze studie werden netwerkfarmacologie en moleculaire docking gebruikt om systematisch de actieve componenten, belangrijkste targets en signaleringsroutes van Rhizoma Drynariae (RD) tegen RCI te onderzoeken. Achttien actieve ingrediënten van RD en 213 niet-redundante targets werden geïdentificeerd via TCMSP, ETCM en SymMap, terwijl 870 RCI-gerelateerde targets werden opgehaald uit GeneCards en OMIM, wat resulteerde in 71 overlappende kandidaat-targets. Analyse van het proteïne-proteïne-interactienetwerk en screening met cytoHubba onthulden tien hub-genen, waaronder TNF, IL6, VEGFA, PTGS2, CASP3, AKT1, CCL2, PPARG, MAPK3 en HMOX1. Gene Ontology-verrijking legde de nadruk op ontstekingsrespons, oxidatieve stress, angiogenese, celproliferatie en ECM-organisatie, terwijl KEGG-pathwayanalyse wees op de TNF-, PI3K‑Akt-, MAPK- en HIF‑1-signaleringsroutes. Moleculaire docking bevestigde een stabiele binding met hoge affiniteit van eriodictyol, luteoline, catechine, naringenine en aureusidine aan deze kernproteïnen. Collectief oefent RD anti-RCI-effecten uit via een netwerk van meerdere componenten, meerdere targets en meerdere pathways, wat RCI potentieel verlicht door ontsteking en apoptose te onderdrukken, angiogenese te bevorderen en ECM-herstel te verbeteren, waardoor een theoretische basis wordt geboden voor de klinische toepassing en experimentele validatie ervan.
Inleiding
Letsel aan de rotator cuff (RCI) is een van de meest voorkomende schouderaandoeningen in de orthopedie en sportgeneeskunde, waarbij ongeveer 20% van de volwassenen boven de 20 jaar en tot 54% van de personen boven de 60 jaar worden getroffen1,2. RCI wordt pathologisch gekenmerkt door peesdegeneratie, infiltratie van ontstekingscellen, excessieve apoptose van tenocyten, onvoldoende neovascularisatie en een verstoorde synthese van de extracellulaire matrix, wat leidt tot chronische schouderpijn, beperkte mobiliteit, spieratrofie en zelfs gewrichtsinstabiliteit3. Indien onbehandeld, kan RCI de kwaliteit van leven ernstig verminderen en een zware sociaaleconomische last opleveren4. Huidige therapeutische strategieën voor RCI omvatten conservatieve behandeling en chirurgische hersteloperaties5. Nietsteroïde anti-inflammatoire geneesmiddelen (NSAID's) en corticosteroid-injecties verlichten de pijn, maar brengen risico's met zich mee op gastro-intestinale letsels, renale dysfunctie, kraakbeendegeneratie en osteoporose6,7. Chirurgisch herstel verbetert de functie op korte termijn, maar wordt beperkt door hoge percentages heropbreuken, postoperatieve adhesies en een matige kwaliteit van de genezing op lange termijn8,9. Daarom is er een dringende behoefte aan de ontwikkeling van veilige, effectieve en multi-target therapeutische middelen voor RCI.
De traditionele Chinese geneeskunde (TCM) heeft een lange geschiedenis in de behandeling van musculoskeletale aandoeningen, met de voordelen van multi-componenten, multi-targets en een lage toxiciteit10. Rhizoma Drynariae (RD), het gedroogde wortelstokje van Drynaria fortunei (Kunze) J. Sm., is een representatief botversterkend kruid dat de bloedcirculatie bevordert, bloedstase opheft en het herstel van pezen en botten versnelt11,12. De moderne farmacologie heeft bevestigd dat flavonoïden de belangrijkste actieve ingrediënten van RD zijn, welke ontstekingsremmende, antioxidatieve, osteogene en chondroprotectieve effecten uitoefenen13. RD wordt op grote schaal gebruikt bij osteoporose, artrose, necrose van de femurkop en degeneratie van de tussenwervelschijven14,15,16. Er is echter nog geen systematische studie uitgevoerd naar de effectiviteit en het mechanisme van RD tegen RCI. Netwerkfarmacologie is een opkomende interdisciplinaire benadering die bio-informatica, systeembiologie en farmacologie integreert, wat ideaal is voor het ontcijferen van het holistische mechanisme van TCM17,18. Het maakt de systematische constructie van het regulatienetwerk "medicijn–component–target–pathway–ziekte" en de high-throughput voorspelling van potentiële therapeutische targets mogelijk19. In deze studie werd netwerkfarmacologie gecombineerd met moleculaire docking om de actieve componenten, hubgenen en kernsignaleringspaden van RD bij de behandeling van RCI te onderzoeken, met als doel een theoretische basis te bieden voor klinische toepassing en vervolgonderzoek.
Protocol
Deze studie maakte uitsluitend gebruik van geanonimiseerde openbare bio-informatica-databases en omvatte geen experimenten met mensen of dieren. In overeenstemming met Artikel 32 van de nationale ethische toetsingsregelingen van China en de Verklaring van Helsinki zijn ethische goedkeuring en geïnformeerde toestemming kwijtgescholden. Alle gebruikte materialen in deze studie zijn vermeld in de Tabel met Materialen.
Studieontwerp en workflowdiagram
De volledige workflow van deze netwerkfarmacologische studie, inclusief de screening van bestanddelen, targetacquisitie, netwerkconstructie, verrijkingsanalyse en verificatie via moleculaire docking, werd in elke stap uitgevoerd volgens uniforme bioinformatica-standaarden om de reproduceerbaarheid van alle voorspelde gegevens te waarborgen (Figuur 1).
Screening op actieve bestanddelen in RD
De Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform (TCMSP, https://old.tcmsp-e.com/tcmsp.php) was een online platform gebouwd op basis van kruidensysteemfarmacologie20. Het verzamelde uitgebreid farmacokinetische parameters van natuurlijke verbindingen, waaronder orale biologische beschikbaarheid (OB), drug-likeness (DL), bloed-hersenbarrière en de bijbehorende targetinformatie. De auteurs voerden het trefwoord "Rhizoma Drynariae" in om alle chemische bestanddelen van RD in de TCMSP-database te zoeken, en selecteerden gekwalificeerde actieve bestanddelen op basis van indexen voor absorptie, distributie, metabolisme en excretie (ADME), met OB ≥ 30% en DL ≥ 0,18. De verbindingen die aan deze twee standaarden voldeden, werden behouden als kandidaat-actieve bestanddelen voor het onderzoeken van het therapeutische mechanisme van RD tegen RCI. Datum van database-toegang: TCMSP V2.3 [2025-12-08]. De geëxporteerde velden omvatten de naam van de verbinding, de OB-waarde, de DL-waarde en de bijbehorende targetproteïne-vermeldingen. Dubbele vermeldingen van verbindingen werden handmatig verwijderd.
Verzameling van potentiële targets van RD
De onderzoekers hieven actiedoelen van RD op uit drie onafhankelijke databases: TCMSP, The Encyclopedia of Traditional Chinese Medicine (ETCM, http://www.tcmip.cn/ETCM/)21 en SymMap (http://www.symmap.org/)22. TCMSP diende als een speciaal farmacologisch platform voor kruidengeneeskunde dat de onderlinge relaties tussen kruidengeneesmiddelen, kleine moleculaire verbindingen, eiwitdoelen en menselijke ziekten registreert. ETCM integreerde gestandaardiseerde informatie over veelvoorkomende Chinese medicinale kruiden en formules, waarbij gegevens over kruidingsbestanddelen, doelgenen, pathways en ziekten werden geregistreerd. SymMap integreerde TCM-theorieën en moderne geneeskunde via moleculaire mechanismen en symptoommapping. Bij het extraheren van drugdoelen werd de soort uniform ingesteld op Homo sapiens. Na het verkrijgen van ruwe doelwit-eiwitsequenties werden alle doelwitvermeldingen via de UniProt-database (https://www.uniprot.org/)23 omgezet in uniforme standaard gene symbols. Dubbele doelgenen werden geëlimineerd, en de gededupliceerde set van RD-doelen werd bewaard voor cross-analyse met ziekte-doelen. Datums van database-toegang: ETCM V2.0 [2025-12-10], SymMap V2.0 [2025-12-11], UniProt release [2025-12-12]. De auteurs exporteerden ruwe doelwit-eiwitvermeldingen uit TCMSP, ETCM en SymMap. UniProt werd gebruikt om eiwitidentificatoren te mappen naar officiële menselijke HUGO gene symbols. Dubbele doelen afkomstig uit meerdere databases werden verwijderd, waarbij één uniek gene symbol per doel werd behouden.
Zoeken naar potentiële doelen voor RCI
Er werden twee gezaghebbende databases gebruikt om menselijke genen gerelateerd aan RCI te screenen met het zoekwoord "rotator cuff injury". GeneCards (https://www.genecards.org/) aggregeerde multi-omics-gegevens van meer dan 150 genetische platforms en bood annotaties voor genfuncties24. De Online Mendelian Inheritance in Man (OMIM, https://omim.org/) legde menselijke erfelijke ziekten vast en onthulde correlaties tussen genvariaties en klinische fenotypes25. Alle RCI-geassocieerde genvermeldingen, inclusief gennamen en ID's, werden geëxtraheerd. De gegevens van de twee databases werden samengevoegd en gededupliceerd om een volledige pool van pathogene genen te verkrijgen voor Venn-doorsnedingsanalyse. Datums van database-toegang: GeneCards [2025-12-15], OMIM [2025-12-21]. Zoekterm: “rotator cuff injury”. De geëxporteerde velden bevatten ziekte-gerelateerde menselijke gennamen en gen-ID's. Dubbele genvermeldingen tussen de twee databases werden na het samenvoegen verwijderd. Het soortfilter werd ingesteld op Homo sapiens.
Constructie van een eiwit-eiwitinteractienetwerk (PPI-netwerk)
De gescreende RD-doelwitdataset en de RCI-pathogene gen dataset werden geüpload naar het online platform Venny (https://bioinfogp.cnb.csic.es/tools/venny/) om een Venn-diagram te genereren en overlappende gedeelde genen te screenen. De snijpuntgenen werden geïmporteerd in STRING v11.5 (https://cn.string-db.org/) voor de constructie van het PPI-netwerk26. STRING retrieves geverifieerde en voorspelde eiwitinteracties, die meer dan 24 miljoen eiwitten van meer dan 5000 soorten bestrijken. De soort werd ingesteld op Homo sapiens, en de afkapwaarde voor de betrouwbaarheidsscore was 0,7 om interactieparen met een lage geloofwaardigheid te filteren. Geëxporteerde PPI-bestanden werden geïmporteerd in Cytoscape 3.8.0 voor visualisatie en topologische analyse27. Venny 2.0 werd geraadpleegd op [2025-12-24] voor de berekening van het Venn-diagram. Toegangsdatum STRING v11.5: [2025-12-28]. De auteurs exporteerden de volledige eiwit-eiwitinteractietabel in TSV-formaat, inclusief eiwitidentificatoren, gensymbolen en gecombineerde betrouwbaarheidsscores voor de interacties.
Hub-genanalyse
De cytoHubba-plugin, geïntegreerd in Cytoscape 3.8.0, analyseerde de topologische kenmerken van elke netwerkknoop. De top 10 hub-genen met de hoogste Maximal Clique Centrality (MCC)-scores werden geselecteerd. MCC is een ingebouwd ranking-algoritme binnen cytoHubba; hogere MCC-scores duiden op kritischere topologische posities binnen het PPI-netwerk. Deze genen oefenen kernregulerende effecten uit in het gehele netwerk.
Pathway-enrichingsanalyse van Gene Ontology (GO) en Kyoto Encyclopedia of Genes and Genomes (KEGG)
Alle overlappende therapeutische targets van RD tegen RCI werden geïmporteerd in de software R x64 4.0.3, waarbij de soort werd ingesteld op Homo sapiens. Met het Bioconductor clusterProfiler-pakket werd de GO- en KEGG-verrijkingsanalyse uitgevoerd. De GO-analyse bestond uit drie modules: biologisch proces (BP), cellulaire component (CC) en moleculaire functie (MF), waarbij biologische gedragingen, subcellulaire lokalisatie en biochemische functies van targetproteïnen afzonderlijk werden geannoteerd28. De KEGG-analyse koppelde genen aan intracellulaire signaleringscascades om de distributie van targets in diverse biologische pathways te observeren29. Significant verrijkte BP-, CC- en MF-termen, evenals kernpathways gerelateerd aan de RD-interventie bij RCI, werden geëxtraheerd, en alle verrijkingsresultaten werden geëxporteerd voor plotting, met p < 0,05 als significantiedrempel.
Moleculaire docking-simulatie
Hub-genen die via PPI-analyse waren gescreend, werden gedefinieerd als eiwitreceptoren, en actieve bestanddelen van RD werden ingesteld als kleine-molecuul liganden. Er werd een moleculaire docking-simulatie uitgevoerd om de natuurlijke bindingsinteracties tussen hub-eiwitten en de overeenkomstige bestanddelen te onderzoeken. Driedimensionale ligandstructuren werden gedownload van PubChem (https://pubchem.ncbi.nlm.nih.gov/)30, en kristalstructuren van de receptoren werden verkregen via RCSB PDB (https://www.rcsb.org/)31. Receptorstructuren werden voorbehandeld in AutoDock 432, inclusief het verwijderen van overtollig water en het toevoegen van polaire waterstofatomen. De batch-dockingberekening werd voltooid met AutoDock Vina, in combinatie met Open Babel-software. Complexen met een vrije bindingsenergie ≤ −7,0 kcal/mol werden gedefinieerd als stabiele bindingsstructuren die de hoogst gerangschikte dockingcomplexen vertegenwoordigen. Complexen met een vrije bindingsenergie ≤ −7,0 kcal/mol werden gedefinieerd als stabiele bindingsstructuren met een hoge intermoleculaire affiniteit. Deze empirische afkapwaarde wordt gemeenschappelijk toegepast in in-silico onderzoeken naar botanische bioactieve verbindingen op basis van AutoDock-Vina, hoewel deze geen vervanging is voor experimentele validatie van eiwit-ligandinteracties33. De 20 dockingcomplexen met de optimale affiniteit werden geïmporteerd in PyMOL om driedimensionale diagrammen van de bindingsconformatie te tekenen34. PubChem toegangsdatum: [2026-02-10]; RCSB-PDB toegangsdatum: [2026-02-03]. Structuren van kleine moleculen werden opgehaald op basis van de naam van de verbinding; receptorstructuren van eiwitten werden opgehaald via de PDB-toegang-ID's die overeenkwamen met het gen.
Statistische analyse
R x64 4.0.3, Cytoscape 3.8.0 en PyMOL werden gebruikt voor alle bio-informatica statistieken en mapping. p < 0,05 vertegenwoordigde een statistisch significant verschil voor alle verrijkingselementen.
Resultaten
De actieve bestanddelen van RD
In totaal werden 71 ruwe chemische bestanddelen uit de TCMSP opgehaald met "Rhizoma Drynariae" als trefwoord. Een tweede screening werd uitgevoerd op basis van ADME-criteria (OB ≥ 30%, DL ≥ 0.18), waarna uiteindelijk 18 bioactieve bestanddelen met een gunstige orale absorptie en druggability werden verkregen. Tabel 1 vat de gedetailleerde basisinformatie van deze 18 actieve bestanddelen samen. Deze 18 verbindingen vormden de multicomponent materiële basis van RD tegen RCI.
Relevante gentargets van RD
De databanken TCMSP, ETCM en SymMap werden doorzocht naar doelgenen die overeenkomen met de actieve bestanddelen van RD, waarbij in totaal 327 oorspronkelijke doelwitvermeldingen werden verzameld. Na integratie van de gegevens en het verwijderen van dubbele gensymbolen werden 213 niet-redundante potentiële doelgenen van RD verkregen voor verdere intersectieanalyse.
Relevante gentargets voor RCI
De databanken Genecards en OMIM werden doorzocht met de zoekterm "rotator cuff injury", waarbij 989 ruwe gen-vermeldingen gerelateerd aan RCI werden verkregen. Na dataintegratie en deduplicatie werden 870 unieke humane pathogene genen geïdentificeerd die nauw betrokken zijn bij de progressie van RCI.
Constructie van het PPI-netwerk
Een intersectieanalyse tussen 213 RD-doelgenen en 870 RCI-pathogene genen identificeerde 71 overlappende genen, die werden gedefinieerd als potentiële therapeutische targets van RD voor de behandeling van RCI. Er werd een Venn-diagram gegenereerd met de software Venny 2.0 om de intersectierelatie weer te geven (Figuur 2). De 71 overlappende targets werden geïmporteerd in STRING om het PPI-netwerk van RD bij de interventie van RCI te construeren (Figuur 3). De volledige PPI-gegevens werden geïmporteerd in Cytoscape, en cytoHubba screende de top 10 hub-genen met de hoogste MCC-scores: TNF, IL6, VEGFA, PTGS2, CASP3, AKT1, CCL2, PPARG, MAPK3, HMOX1. Hun MCC-topologische informatie is samengevat in Tabel 2 en gevisualiseerd in Figuur 4. De 71 intersecterende genen vertegenwoordigen de kerndoelen die het therapeutische effect van RD tegen RCI mediëren.
GO- en KEGG-verrijkingsanalyse
Om het moleculaire mechanisme van RD-kandidaatdoelen bij de behandeling van RCI te onderzoeken, is met het clusterProfiler-pakket een GO- en KEGG-verrijkingsanalyse uitgevoerd op overlappende therapeutische doelen. Voor BP, CC en MF zijn afzonderlijke GO-verrijkingsstatistieken berekend. Figuren 5A–B, 6A–B en 7A–B illustreren de top 10 significant verrijkte vermeldingen van BP, CC en MF, en subgrafiek B van elke figuur toont de genverdeling van elke functionele term. Verder is een KEGG-verrijkingsanalyse uitgevoerd om de kernpaden te ontsluiten die betrokken zijn bij de RD-interventie bij RCI, en de top 30 verrijkte paden zijn gevisualiseerd in Figuur 8.
Moleculaire dockingsimulatie
De 10 belangrijkste hub-genen werden ingesteld als eiwitreceptoren, en alle 18 actieve bestanddelen van RD werden gebruikt als liganden voor docking-berekeningen via AutoDock Vina en Open Babel. PyMOL werd gebruikt om de bindingsconformaties van ligand-receptor te visualiseren. De docking-resultaten toonden aan dat de meeste hub-doeleiwitten stabiele bindingsstructuren vormden met de actieve bestanddelen van RD. Tabel 3 en Figuur 9 bevatten de volledige docking-parameters en driedimensionale bindingsdiagrammen van de 20 complexen met de optimale bindingsaffiniteit.
In de huidige netwerkfarmacologische analyse werden 18 bioactieve ingrediënten van RD en 213 niet-redundante geneesmiddelgerelateerde targets geïdentificeerd. Na doorsnijding met 870 RCI-geassocieerde genen werden 71 gedeelde therapeutische kandidaat-targets verkregen. De constructie van een PPI-netwerk en cytoHubba‑MCC screening leverden tien hub-genen op: TNF, IL6, VEGFA, PTGS2, CASP3, AKT1, CCL2, PPARG, MAPK3 en HMOX1. De GO-verrijking omvatte BP, CC en MF, terwijl KEGG-verrijking meerdere verrijkte signaleringspaden identificeerde. Moleculaire docking-simulaties bevestigden een gunstige bindingsaffiniteit tussen de belangrijkste actieve bestanddelen van RD en deze hub-targeteiwitten.
DATAbeschikbaarheid:
Alle ruwe en verwerkte gegevens die in deze studie zijn gegenereerd, inclusief doellijsten, PPI-netwerkbestanden, GO- en KEGG-verrijkingsresultaten en de moleculaire docking-matrix, zijn gedeponeerd in de Science Data Bank. De link voor toegang tot de ruwe gegevens is https://www.scidb.cn/anonymous/alVOVlJu.
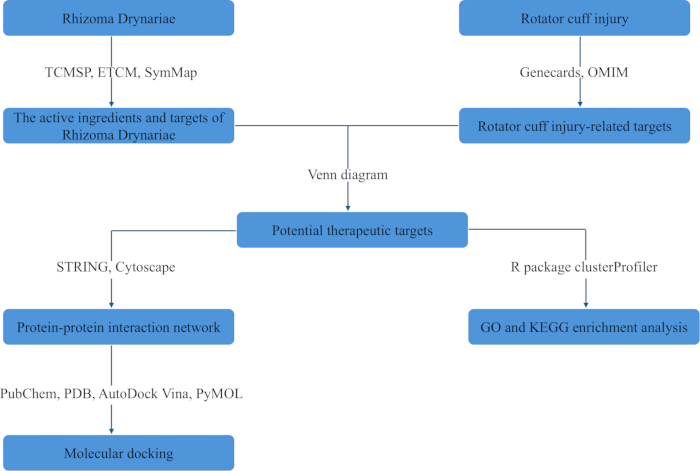
Figuur 1: Schematische workflow van de bio-informatica-pipeline die in deze studie is toegepast. Beginnend vanaf links werden kandidaat bioactieve verbindingen en hun bijbehorende RD-targets opgehaald uit de TCMSP-, ETCM- en SymMap-databanken. Aan de rechterkant werden genen geassocieerd met RCI opgehaald uit GeneCards en OMIM. De overlappende gentargets van deze twee datasets werden geïdentificeerd met behulp van een Venn-diagram en gedefinieerd als potentiële therapeutische targets. De gedeelde targets werden vervolgens in twee afzonderlijke takken verwerkt: één tak construeerde een proteïne-proteïne-interactienetwerk met behulp van STRING en Cytoscape; de andere tak voerde GO- en KEGG-enrichmentanalyses uit met behulp van het R-pakket clusterProfiler. De hub-genen die uit het PPI-netwerk waren geëxtraheerd, werden verder gevalideerd door moleculaire docking, waarbij de structurele voorbereiding en simulatie werden voltooid met PubChem, PDB, AutoDock Vina en PyMOL. Afkortingen: RD = Rhizoma Drynariae, RCI = rotator cuff injury, TCMSP = The Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform, ETCM = The Encyclopedia of Traditional Chinese Medicine, OMIM = The Online Mendelian Inheritance in Man, GO = gene ontology, KEGG = Kyoto encyclopedia of genes and genomes. Klik hier om een grotere versie van deze figuur te bekijken.
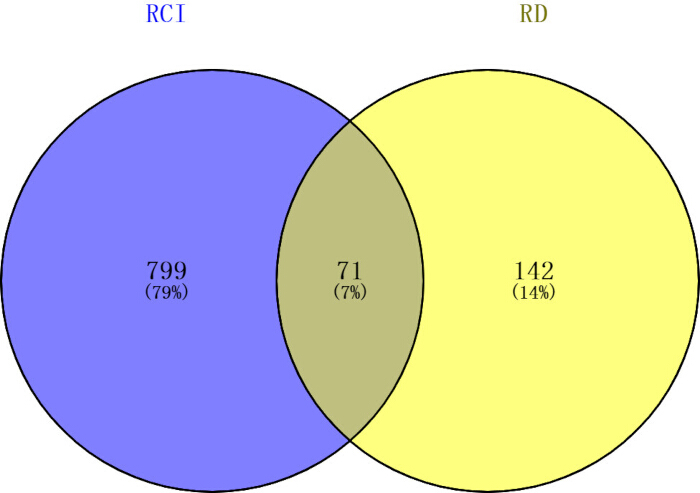
Figuur 2: Venn-diagram van overlappende targets tussen RD en RCI. De blauwe cirkel vertegenwoordigt de targets geassocieerd met RCI. De gele cirkel vertegenwoordigt de potentiële therapeutische targets van RD. Het overlappende olijfgroene gebied geeft de gedeelde targets tussen RD en RCI aan. De getallen en percentages in elk gebied geven het aantal en de proportie unieke of gedeelde targets aan. Afkortingen: RD = Rhizoma Drynariae, RCI = rotator cuff injury. Klik hier om een grotere versie van deze figuur te bekijken.
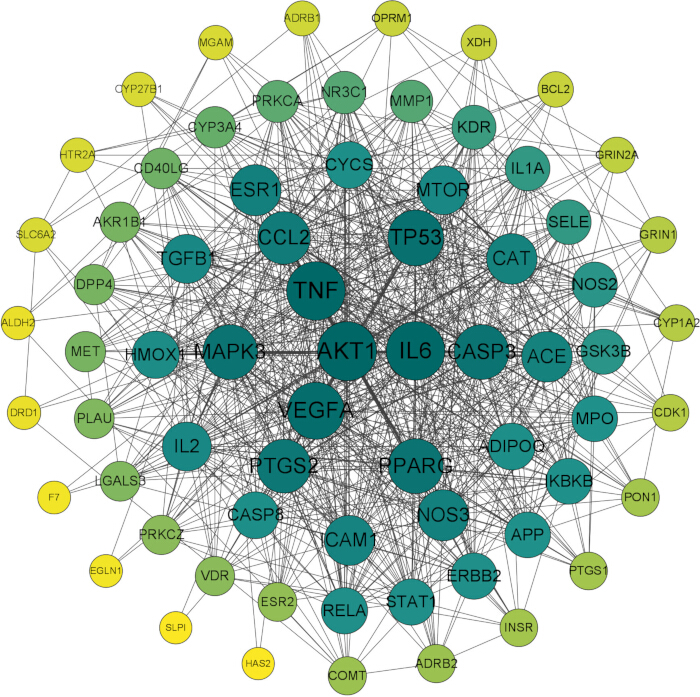
Figuur 3: PPI-netwerk gegenereerd vanuit de 71 overlappende genetargets die RD en RCI verbinden. Elke cirkel in het netwerk vertegenwoordigt een targetgen, gelabeld met het officiële gensymbool. Lijnen die twee cirkels verbinden illustreren eiwit-eiwitassociaties die zijn gemineerd uit openbare bioinformatische databases. De grootte van de knoop en de kleurverzadiging weerspiegelen de topologische significantie van individuele genen binnen het netwerk. Genen met grotere cirkels en diepere groentinten behalen hogere topologische scores en bekleden centralere posities; kleinere, bleekgele cirkels duiden genen aan met een zwakkere topologische belangrijkheid. Afkortingen: RD = Rhizoma Drynariae, RCI = rotator cuff injury, PPI = protein-protein interaction. Klik hier om een grotere versie van deze figuur te bekijken.
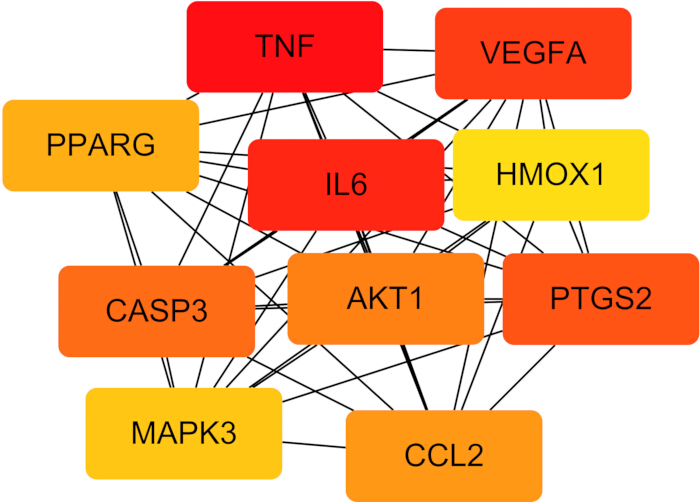
Figuur 4: Top 10 hub-genen geïdentificeerd uit het PPI-netwerk met behulp van de cytoHubba-plug-in. Rechthoekige kaders representeren hub-genen, elk gelabeld met het officiële gensymbool. Zwarte lijnen die de kaders verbinden, weerspiegelen eiwitinteracties tussen deze kerndoelen. De kleurgradiënt van helderrood via oranje naar geel visualiseert de rangschikking van hub-genen op basis van MCC-scores berekend door de cytoHubba-plug-in; helderrode kaders duiden genen aan met de hoogste MCC-scores en de grootste netwerkrelevantie, terwijl gele kaders genen met relatief lagere scores markeren. Afkortingen: PPI = proteïne-proteïne interactie, MCC = Maximal Clique Centrality.Klik hier om een grotere versie van deze figuur te bekijken.
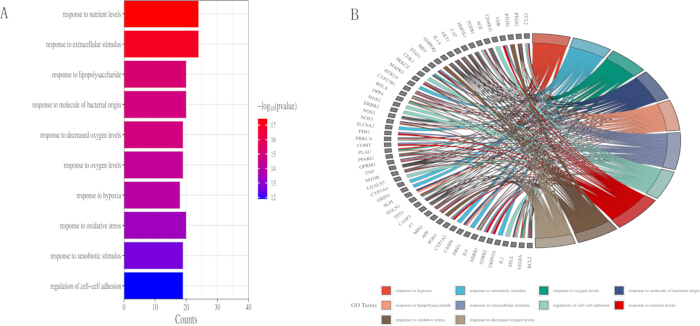
Figuur 5: BP-verrijkingsanalyse van de 71 gedeelde doelgenen van RD tegen RCI. (A) GO-verrijkingsanalyse van potentiële therapeutische doelen voor BP. Het is een horizontaal staafdiagram dat de top 10 significant verrijkte GO-termen voor biologische processen laat zien. De horizontale X-as vertegenwoordigt het aantal genen, wat correspondeert met het aantal doelgenen dat aan elke GO-term is toegewezen. De verticale Y-as somt de individuele verrijkte GO-termen op. De continue kleurenbalk aan de rechterkant codeert -log10(p-waarde); warmere roodtinten duiden op een hogere -log10(p-waarde) en een sterkere statistische significantie, terwijl koelere paarse en blauwe tinten een lagere significantie aanduiden. (B) Relatie tussen potentiële therapeutische doelen en BP. Paneel B is een koorddiagram dat de paarsgewijze associaties tussen verrijkte GO-termen en hun overeenkomstige doelgenen illustreert. De buitenste cirkelsegmenten zijn verdeeld in twee categorieën: gekleurde blokken staan voor verschillende GO-termen voor biologische processen, en grijze rechthoekige streepjes labelen de individuele symbolen van de doelgenen. Gebogen linten binnen de cirkel verbinden GO-termen met hun bijbehorende doelgenen, waarbij elk lint één gen koppelt aan de GO-term waarin het participeert. De kleur van elk lint is afgeleid van de kleur van de bijbehorende GO-term in de buitenring. Een legenda onderaan koppelt elke kleur aan de respectievelijke GO-term. Afkortingen: RD = Rhizoma Drynariae, RCI = rotator cuff injury, BP = biologisch proces, GO = gene ontology. Klik hier om een grotere versie van deze figuur te bekijken.
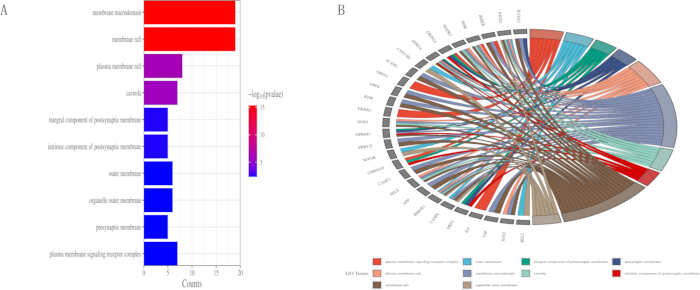
Figuur 6: GO-CC-termen afgeleid van de 71 kandidaat-doelen van RD bij de behandeling van RCI. (A) GO-verrijkingsanalyse van potentiële therapeutische doelen voor CC. (B) Relatie tussen potentiële therapeutische doelen en CC. Paneel A is een horizontaal staafdiagram dat de top 10 significant verrijkte GO-cellulaire component-vermeldingen weergeeft. De horizontale X-as kwantificeert het aantal doelgenen dat aan elke GO-term is toegewezen, aangeduid als Counts. Beschrijvingen van verrijkte GO-cellulaire componenten zijn gerangschikt langs de verticale Y-as. De kleurenbalk aan de rechterzijde koppelt kleurvariatie aan -log10(pvalue)-waarden; helderrood komt overeen met hogere -log10(pvalue)-waarden en sterkere statistische significantie, terwijl blauwtinten lagere significantieniveaus vertegenwoordigen. Paneel B presenteert een chord-diagram dat verbindingen visualiseert tussen verrijkte GO-cellulaire component-termen en hun geassocieerde doelgenen. Segmenten op de buitenring zijn verdeeld in twee groepen: gekleurde blokken staan voor verschillende GO-cellulaire component-termen, en grijze streepjes duiden individuele symbolen van doelgenen aan. Gebogen linten binnen de cirkel verbinden elk gen met de bijbehorende GO-term, waarbij elk lint de kleur aanneemt van de overeenkomstige GO-term op de buitenring. Een legenda onderaan definieert de kleurcodering voor alle GO-cellulaire component-categorieën. Afkortingen: RD = Rhizoma Drynariae, RCI = rotator cuff injury, CC = cellulaire component, GO = gene ontology Klik hier om een grotere versie van deze figuur te bekijken.
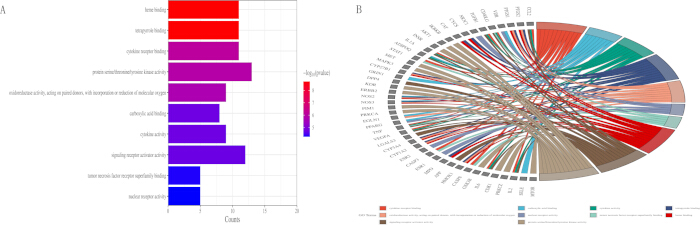
Figuur 7: MF-verrijkingsanalyse uitgevoerd op de 71 overlappende doelgenen van RD voor RCI-interventie. (A) GO-verrijkingsanalyse van potentiële therapeutische doelen voor MF. (B) Relatie tussen potentiële therapeutische doelen en MF. Paneel A is een horizontaal staafdiagram dat de top 10 significant verrijkte GO-moleculaire functietermen rangschikt. De waarden op de horizontale X-as vertegenwoordigen de genaantallen, die overeenkomen met het totale aantal doelgenen geannoteerd aan elke moleculaire functie-entry. De verticale Y-as vermeldt individuele beschrijvingen van GO-moleculaire functies. De kleurgradiëntbalk aan de rechterkant vertaalt kleurvariaties naar -log10(p-waarde)-metrieken; helderrood komt overeen met hogere -log10(p-waarde)-waarden en een sterkere statistische significantie, terwijl blauwtinten een zwakkere significantie aangeven. Paneel B is een chord-diagram dat de relaties tussen verrijkte GO-moleculaire functiecategorieën en hun bijbehorende doelgenen in kaart brengt. Segmenten op de buitenring bevatten twee klassen labels: gekleurde blokken duiden verschillende GO-moleculaire functietermen aan, en kleine grijze rechthoekige streepjes markeren individuele symbolen van doelgenen. Gebogen linten die naar binnen lopen vanaf de buitenring verbinden elk gen met de bijbehorende functionele term, waarbij elk lint de kleur overneemt die is toegewezen aan de corresponderende GO-term. Een legenda onderaan definieert de kleurcodering voor alle in de plot getoonde GO-moleculaire functiecategorieën. Afkortingen: RD = Rhizoma Drynariae, RCI = rotator cuff-letsel, MF = moleculaire functie, GO = gene ontology Klik hier om een grotere versie van deze figuur te bekijken.
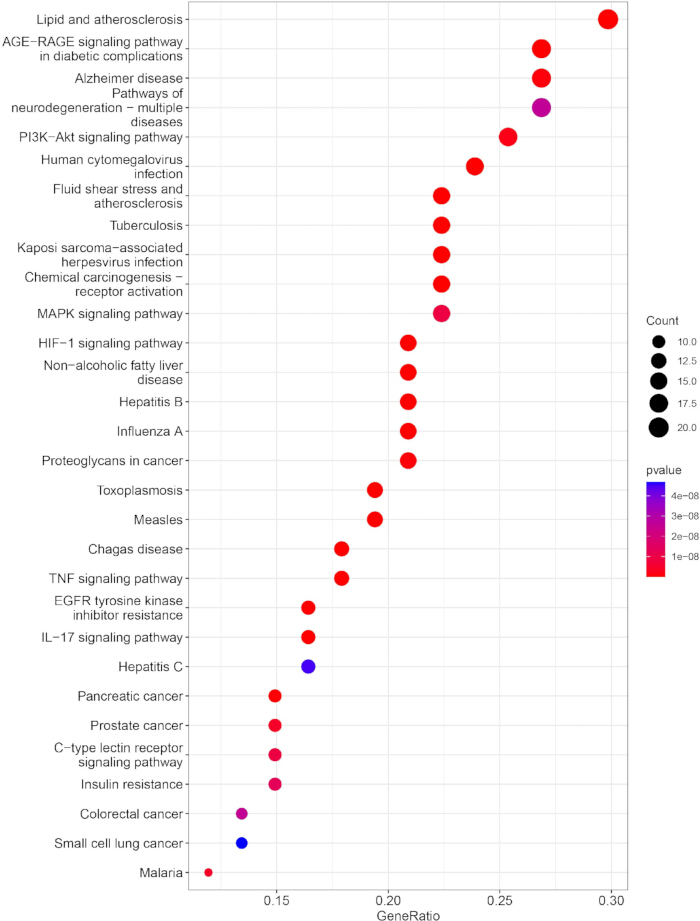
Figuur 8: KEGG-pathwayverrijkingsanalyse van de 71 gedeelde doelgenen van RD tegen RCI. Deze dot plot visualiseert de belangrijkste verrijkte KEGG-pathways. De verticale Y-as bevat de namen van individuele verrijkte pathways. De horizontale X-as representeert de GeneRatio, gedefinieerd als de verhouding tussen de doelgenen die aan een pathway zijn gekoppeld en het totale aantal genen in die pathway. Elke cirkelvormige stip staat voor één verrijkte pathway. De grootte van de stip komt overeen met het aantal genen, waarbij grotere cirkels wijzen op meer doelgenen die aan de pathway zijn geannoteerd. De kleur van de stip weerspiegelt de p-waarde: rood geeft lagere p-waarden en een sterkere statistische significantie aan, terwijl donkerblauw wijst op hogere p-waarden en een zwakkere statistische significantie. Twee legenda's aan de zijkant definiëren afzonderlijk de schaal voor het aantal genen en de kleurtoewijzing van de p-waarde. Afkortingen: RD = Rhizoma Drynariae, RCI = rotator cuff injury, KEGG = Kyoto encyclopedia of genes and genomes. Klik hier om een grotere versie van deze figuur te bekijken.
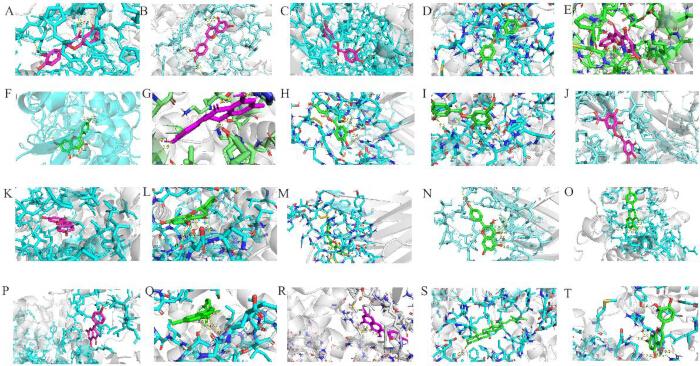
Figuur 9: De hoogst gerangschikte dockingcomplexen. (A) (PTGS2, eriodictyol, -9.7 kcal/mol). (B) (PTGS2, luteoline, -9.6 kcal/mol). (C) (PTGS2, catechine, -9.5 kcal/mol). (D) (PTGS2, naringenine, -9.5 kcal/mol). (E) (PTGS2, Aureusidine, -9.4 kcal/mol). (F) (PTGS2, kaempferol, -9.2 kcal/mol). (G) (PTGS2, chromaan, -9.1 kcal/mol). (H) (TNF, catechine, -9.1 kcal/mol), (I) (PTGS2, digallaat, -9 kcal/mol). (J) (TNF, digallaat, -9 kcal/mol), (K) (PPARG, chromaan, -8.9 kcal/mol); (L) (PPARG, naringenine, -8.9 kcal/mol), (M) (TNF, Aureusidine, -8.9 kcal/mol); (N) (TNF, kaempferol, -8.8 kcal/mol); (O) (MAPK3, chromaan, -8.7 kcal/mol); (P) (MAPK3, naringenine, -8.7 kcal/mol); (Q) (PPARG, Aureusidine, -8.7 kcal/mol); (R) (PPARG, kaempferol, -8.7 kcal/mol); (S) (PTGS2, 22_Stigmasten_3_one, -8.7 kcal/mol); (T) (MAPK3, luteoline, -8.6 kcal/mol). Panelen A tot en met T illustreren afzonderlijk de berekende bindingsgeometrie van individuele kleine molecuulverbindingen binnen de bindingsholte van de overeenkomstige eiwitdoelen. Cyaankleurige stick-modellen stellen de aminozuurresiduen voor die de eiwitbindingsholte bekleden. Kleine molecuulliganden zijn weergegeven als magenta of groene sticks om verschillende chemische structuren te onderscheiden. Gele stippellijnen markeren intermoleculaire waterstofbruggen tussen liganden en residuen in de pocket, waarbij numerieke annotaties de afstanden van de waterstofbruggen in angstroms (Å) aangeven. Het doorschijnende witte oppervlak schetst de algehele 3D-topologie van elke eiwitreceptor. Alle berekeningen van de bindingsposes werden uitgevoerd via rigid-receptor moleculaire docking met AutoDock Vina software. Klik hier om een grotere versie van deze figuur te bekijken.
| Mol-ID | Molecuulnaam | orale biologische beschikbaarheid (OB) (%) | drug-likeness (DL) |
| MOL001040 | (2R)-5,7-dihydroxy-2-(4-hydroxyphenyl)chroman-4-on | 42.36 | 0.21 |
| MOL001978 | Aureusidine | 53.42 | 0.24 |
| MOL002914 | Eriodyctiol (flavanon) | 41.35 | 0.24 |
| MOL000449 | Stigmasterol | 43.83 | 0.76 |
| MOL000358 | beta-sitosterol | 36.91 | 0.75 |
| MOL000422 | kaempferol | 41.88 | 0.24 |
| MOL004328 | naringenine | 59.29 | 0.21 |
| MOL000492 | (+)-catechine | 54.83 | 0.24 |
| MOL005190 | eriodictyol | 71.79 | 0.24 |
| MOL000569 | digallaat | 61.85 | 0.26 |
| MOL000006 | luteoline | 36.16 | 0.25 |
| MOL009061 | 22-stigmastaan-3-on | 39.25 | 0.76 |
| MOL009063 | Cyclolaudenolacetaat | 41.66 | 0.79 |
| MOL009075 | cycloartenon | 40.57 | 0.79 |
| MOL009076 | cyclolaudenol | 39.05 | 0.79 |
| MOL009078 | davallioside A_qt | 62.65 | 0.51 |
| MOL009087 | marioside_qt | 70.79 | 0.19 |
| MOL009091 | xanthogalenol | 41.08 | 0.32 |
Tabel 1: Farmacokinetische profielen van achttien kandidaat bioactieve bestanddelen afgeleid van RD. Verbindingen werden opgehaald uit de TCMSP-database en gefilterd op basis van twee ADME-gerelateerde drempelwaarden: OB ≥ 30% en DL ≥ 0,18. De kolommen vermelden het TCMSP-toegangsnummer (Mol ID), de naam van de verbinding, de berekende OB-waarde (%) en de DL-score voor elk gescreend bestanddeel. Afkortingen: RD = Rhizoma Drynariae, RCI = rotator cuff-letsel, ADME = absorptie, distributie, metabolisme, excretie, TCMSP = The Traditional Chinese Medicine Systems Pharmacology Database and Analysis Platform, OB = orale biobeschikbaarheid, DL = drug-likeness.
| Rangschikking | Gen | Naam | Score |
| 1 | TNF | tumornecrosefactor | 328291218366500 |
| 2 | IL6 | interleukine 6 | 328291215913592 |
| 3 | VEGFA | vasculaire endotheliale groeifactor A | 328291215896284 |
| 4 | PTGS2 | prostaglandine-endoperoxide synthase 2 | 328288656326402 |
| 5 | CASP3 | Caspase 3 | 328288180323600 |
| 6 | AKT1 | AKT serine/threonine kinase 1 | 328287745700516 |
| 7 | CCL2 | C-C motief chemokine ligand 2 | 328161521686320 |
| 8 | PPARG | peroxisoom-proliferatie-geactiveerde receptor gamma | 325302724852296 |
| 9 | MAPK3 | mitogeengestimuleerde proteïnekinase 3 | 308779166166218 |
| 10 | HMOX1 | heemoxygenase 1 | 299171945318400 |
Tabel 2: De top 10 hub-genen geïdentificeerd uit het PPI-netwerk. Genen werden gerangschikt op basis van MCC-scores berekend door de cytoHubba-plugin binnen Cytoscape. MCC is een topologische metriek van cytoHubba waarbij hogere numerieke waarden wijzen op een groter topologisch belang binnen het netwerk. De kolommen tonen de rangschikking, het officiële gensymbool, de volledige naam van het gen en de overeenkomstige ruwe MCC-score voor elk hub-gen. Afkortingen: PPI = proteïne-proteïne-interactie, MCC = Maximal Clique Centrality.
| Receptoren | Liganden | Vrije energie (kcal/mol) | Overeenkomstige serienummers in Figuur 9 |
| PTGS2 | eriodictyol | -9.7 | A |
| PTGS2 | luteolin | -9.6 | B |
| PTGS2 | catechin | -9.5 | C |
| PTGS2 | naringenin | -9.5 | D |
| PTGS2 | Aureusidin | -9.4 | E |
| PTGS2 | kaempferol | -9.2 | F |
| PTGS2 | chroman | -9.1 | G |
| TNF | catechin | -9.1 | H |
| PTGS2 | digallate | -9 | I |
| TNF | digallate | -9 | J |
| PPARG | chroman | -8.9 | K |
| PPARG | naringenin | -8.9 | L |
| TNF | Aureusidin | -8.9 | M |
| TNF | kaempferol | -8.8 | N |
| MAPK3 | chroman | -8.7 | O |
| MAPK3 | naringenin | -8.7 | P |
| PPARG | Aureusidin | -8.7 | Q |
| PPARG | kaempferol | -8.7 | R |
| PTGS2 | 22_Stigmasten_3_one | -8.7 | S |
| MAPK3 | luteolin | -8.6 | T |
Tabel 3: Resultaten van de bindingsaffiniteit bij moleculaire docking voor de 20 geselecteerde receptor-ligandcomplexen. Elke rij bevat het receptorproteïne, het kleinmolecuul-ligand, de berekende vrije bindingsenergie (kcal/mol) en het bijbehorende label van het subdiagram in Figuur 9. Negatievere waarden voor de vrije energie komen overeen met een sterkere bindingsstabiliteit tussen de proteinpocket en de ligandverbinding. Afkortingen: PTGS2 = prostaglandine-endoperoxide synthase 2, TNF = tumornecrosefactor, PPARG = peroxisoom proliferatie-geactiveerde receptor gamma, MAPK3 = mitogeen-geactiveerd proteïnekinase 3.
Discussie
RCI is een complexe musculoskeletale aandoening die wordt gekenmerkt door chronische ontsteking, overmatige apoptose van tenocyten, beperkte angiogenese en inadequate remodellering van de extracellulaire matrix, waarbij de gecombineerde pathologische veranderingen leiden tot een slechte genezing van pees naar bot en een suboptimale klinische prognose35. Deze ziekte ontstaat vaak door acuut trauma of langdurige overbelasting van de schouder, waarbij aanhoudende ontsteking het metabole evenwicht van de extracellulaire matrix van de pees doorbreekt36. Klinisch gezien slagen huidige behandelingen er niet in om gelijktijdig meerdere pathologische schakels aan te pakken, wat resulteert in een beperkte effectiviteit en een hoog recidievenpercentage37. RD is een klassiek kruid uit de traditionele Chinese geneeskunde (TCM) dat botten versterkt, de bloedcirculatie activeert en weefselherstel bevordert, en dat al lang klinisch wordt gebruikt voor de behandeling van bot- en peesbeschadigingen38. Het precieze moleculaire regulatiemechanisme van RD tegen RCI is echter in bestaande studies nog niet systematisch geanalyseerd.
Op basis van de bovenstaande onderzoeksachtergrond onthult deze studie systematisch het multi-componenten, multi-target en multi-pathway mechanisme van RD tegen RCI met behulp van netwerkfarmacologie en moleculaire docking. Eerdere fytochemische en farmacologische studies hebben volledig bevestigd dat flavonoïden afkomstig van RD significante ontstekingsremmende, antioxidante, anti-apoptotische en pro-angiogene biologische activiteiten bezitten, welke de kern vormen van de materiële basis voor de weefselherstellende functie39. In overeenstemming met de bevindingen van eerdere studies werden in totaal 18 actieve componenten uit RD geïdentificeerd, waaronder eriodictyol, luteoline, catechine, naringenine en aureusidine werden herkend als kerncomponenten. Een groot aantal fytochemische studies heeft bewezen dat flavonoïden de belangrijkste farmacodynamische stoffen van RD zijn40. Dergelijke kleine molecuulverbindingen kunnen weefselbarrières penetreren en uitgebreide regulerende effecten uitoefenen op de herstelmicro-omgeving van beschadigde pezen41. Hun gunstige ADME-eigenschappen garanderen een goede OB en drug-likeness, wat hun potentieel als natuurlijke therapeutische middelen voor RCI ondersteunt. In tegenstelling tot chemisch gesynthetiseerde medicijnen met een enkel target, kunnen deze natuurlijke flavonoïden gelijktijdig interveniëren bij ontsteking, oxidatieve schade, celoverleving en angiogenese, wat unieke voordelen biedt voor chronische degeneratieve peeslaesies42.
Toenemende studies hebben bevestigd dat het voorkomen en de ontwikkeling van RCI nauw verbonden zijn met de abnormale expressie van meerdere functionele genen, en diverse kerngenen zijn aangetoond als deelnemers aan de pathologische processen van peesontsteking, apoptose en weefselremodellering43. Op basis van het erkende genregulerende mechanisme van RCI heeft deze studie verder onderzoek gedaan naar de therapeutische doelwitten van RD. Eenendzeventig overlappende doelwitten werden geïdentificeerd als potentiële therapeutische doelwitten van RD tegen RCI. PPI-netwerkanalyse screende 10 hubgenen: TNF, IL6, VEGFA, PTGS2, CASP3, AKT1, CCL2, PPARG, MAPK3 en HMOX1. Hiervan zijn TNF en IL6 cruciale pro-inflammatoire cytokinen die inflammatoire cascades triggeren, de proliferatie van tenocyten remmen en de synthese van de extracellulaire matrix onderdrukken, waardoor peesletsel wordt verergerd44. De massale afgifte van deze twee cytokinen zal immuuncellen rekruteren, de inflammatoire reactie versterken en de proliferatie van peenstamcellen beperken45. VEGFA bevordert neovascularisatie op de letselplaats, verbetert de lokale bloedtoevoer en verhoogt de mechanische sterkte van het genezende weefsel46. De overgang tussen pees en bot is van nature arm aan bloedvaten, en een onvoldoende aantal nieuwe vaten is een belangrijke factor die leidt tot een onbevredigende genezingskwaliteit na letsel47. PTGS2 medieert inflammatoire pijn en prostaglandineproductie, terwijl CASP3 een belangrijke uitvoerder is van tenocytapoptose48,49. Overexpressie van PTGS2 zal inflammatoire zwelling en pijn verergeren, terwijl een hoge activatie van CASP3 leidt tot een voortdurend verlies van functionele tenocyten50,51. AKT1 en MAPK3 zijn kernkinasen die celoverleving, proliferatie en differentiatie reguleren, welke essentieel zijn voor peesregeneratie52,53. Matige activatie van deze twee kinasen kan de vitaliteit van herstelcellen behouden en de depositie van de extracellulaire matrix versnellen54. CCL2 rekruteert inflammatoire cellen, terwijl PPARG en HMOX1 anti-inflammatoire en antioxidatieve effecten uitoefenen55,56,57. Deze twee genen kunnen oxidatieve stress verlichten en overmatige inflammatoire infiltratie in lokale peesweefsels verminderen58. Gezamenlijk vormen deze hubgenen een kernregulerend netwerk dat ontsteking, apoptose, angiogenese en weefselremodellering bij RCI moduleert.
Bestaande pathologische studies hebben verduidelijkt dat de pathologische progressie van RCI hoofdzakelijk wordt gedreven door de inflammatoire respons, oxidatieve stress, abnormale celproliferatie en een verstoorde organisatie van de extracellulaire matrix, wat de belangrijkste pathologische schakels zijn tijdens het ontstaan en herstel van RCI59. Op basis hiervan is in de huidige studie een GO-enrichmentanalyse uitgevoerd om het potentiële biologische mechanisme van RD bij de interventie in RCI te onderzoeken. Deze biologische processen zijn precies de cruciale pathologische schakels van RCI tijdens het ontstaan en herstel van de laesie, wat suggereert dat RD gelijktijdig op meerdere pathologische processen kan inwerken60. Een groot aantal eerdere mechanistische studies heeft bevestigd dat de TNF-signaleringsroute, de PI3K-Akt-signaleringsroute, de MAPK-signaleringsroute en de HIF-1-signaleringsroute belangrijke signaleringsroutes zijn die peesinflammatie, celherstel en weefselreconstructie reguleren61,62,63,64. Om het potentiële signaleringsmechanisme van RD bij de behandeling van RCI verder te onderzoeken, is in deze studie een KEGG-pad-enrichmentanalyse uitgevoerd op basis van de bovengenoemde onderzoeksresultaten. De resultaten onthulden dat de werking van RD tegen RCI primair betrokken is bij de vier voornoemde routes. De TNF-signaleringsroute bevordert de inflammatoire respons en tenocytenapoptose, wat fungeert als een upstream-driver van inflammatoire degeneratie van de pees65. De PI3K‑Akt-route versterkt de celoverleving en angiogenese, wat gunstig is voor peesgenezing, en kan meerdere groeifactoren coördineren om de collageensecretie van fibroblasten te faciliteren66,67. De MAPK-signaleringsroute reguleert celproliferatie, differentiatie en synthese van de extracellulaire matrix, en neemt deel aan het gehele proces van peesreconstructie68. De HIF‑1-signaleringsroute reageert op hypoxie en bevordert vasculaire regeneratie, wat de hypoxische micro-omgeving van beschadigde pezen effectief verbetert69. Deze routes vertonen cross-talk en vormen een complex regulerend netwerk, wat de multi-pathway-kenmerken van RD bij de behandeling van RCI volledig belichaamt.
Moleculaire docking is een routinematige en aanvullende verificatiemethode geworden in netwerkfarmacologisch onderzoek, waarmee de bindingsactiviteit tussen actieve bestanddelen en kerndoelen direct kan worden gekarakteriseerd. Daarom is in deze studie moleculaire docking toegepast om de voorspellingsresultaten van de netwerkfarmacologie te verifiëren70. De resultaten toonden aan dat kernflavonoïde componenten van RD stabiel kunnen binden aan de actieve pockets van hub-eiwitten, wat de betrouwbaarheid van de netwerkfarmacologische voorspellingen verder valideert. Deze stabiele bindingsmodi suggereren dat RD direct kan inwerken op sleuteldoelen om therapeutische effecten uit te oefenen. De sterke binding tussen flavonoïde liganden en de actieve sites van hub-eiwitten biedt intuïtief bewijs van moleculaire interactie, wat tevens kandidaatverbindingen oplevert voor daaropvolgende experimenten ter verificatie van de celvoudige functie.
Deze studie kent verschillende beperkingen. Ten eerste zijn de voorspellingen gebaseerd op bioinformatische analyses uit publieke databases, wat kan leiden tot annotatiebias richting veelbestudeerde eiwitten. Genexpressie en eiwitisoformen die specifiek zijn voor de pezen van de rotator cuff werden niet meegenomen, en het ongerichte PPI-netwerk afgeleid van STRING kan de peesspecifieke biologie niet volledig reproduceren. Verrijkte pathways zoals TNF, PI3K‑Akt en MAPK vertegenwoordigen algemene inflammatoire cascades in plaats van signatures die exclusief zijn voor RD. Publieke omics-bronnen kunnen de dynamische pathologische veranderingen in vivo en individuele verschillen in menselijk rotator-cuff-weefsel niet reproduceren. Toekomstig werk zou single-cell RNA-sequencing datasets kunnen integreren om de mechanistische interpretatie te verfijnen. Ten tweede maakte de screening van verbindingen gebruik van empirische ADME-cut-offs (OB ≥ 30%, DL ≥ 0.18), waardoor bioactieve verbindingen met een lage orale biologische beschikbaarheid mogelijk zijn uitgesloten. Voor de moleculaire docking werd een rigid-receptor opstelling gebruikt, waarbij de flexibiliteit van eiwitten en structurele watermoleculen werden genegeerd, zonder biofysische validatie (bijv. SPR, ITC). Positieve drug-controls, sensitiviteitsanalyse, toxiciteitsbeoordelingen en volledige farmacokinetische profilering zijn niet uitgevoerd. Alle resultaten zijn computationele voorspellingen; in vitro cellulaire en in vivo dierproeven zijn vereist om de functies van target-pathways en de regulerende relaties tussen ingrediënten en hub-genen te valideren. Ten derde blijven synergetische interacties tussen meerdere RD-componenten en hun in vivo farmacokinetische gedrag onverkend. Systematisch experimenteel werk is nodig om de crosstalk tussen ingrediënten en de metabole profielen van dit kruidengeneesmiddel te ontcijferen. Deze studie onthult systematisch dat RD RCI behandelt via een regulerend netwerk van meerdere componenten, meerdere targets en meerdere pathways. RD kan therapeutische effecten uitoefenen door inflammatie te remmen, apoptose van tenocyten te verminderen, angiogenese te bevorderen en herstel van de extracellulaire matrix te verbeteren via de TNF-, PI3K‑Akt-, MAPK- en HIF‑1-signaleringspaden. Deze bevindingen bieden een solide theoretische basis voor de klinische toepassing en het mechanistische onderzoek van RD bij RCI.
Openbaarmakingen
De auteurs verklaren dat het onderzoek is uitgevoerd in de afwezigheid van enige commerciële of financiële relaties die zouden kunnen worden opgevat als een potentieel belangenconflict.
Dankbetuigingen
De auteurs zijn dankbaar aan de ontwikkelaars en beheerders van de openbare bio-informaticaresources die in dit werk zijn gebruikt, waaronder TCMSP, ETCM, SymMap, GeneCards, OMIM, STRING, UniProt, PubChem en RCSB‑PDB. Deze open-toegang databanken leverden openbaar beschikbare datasets die de computationele analyses ondersteunden die in deze studie worden beschreven. Dit onderzoek heeft geen externe financiering ontvangen.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| AutoDock Vina | Scripps Research Institute | V1.2.0 | Software voor moleculaire docking voor simulatie van proteïne-ligandbinding; RRID: Niet beschikbaar. URL: https://github.com/ccsb-scripps/AutoDock-Vina |
| clusterProfiler | Bioconductor | V3.2.14 | R-pakket voor GO- en KEGG-verrijkingsanalyse; compatibel met R 4.0.3; RRID: SCR_016884. URL: https://bioconductor.org/packages/release/bioc/html/clusterProfiler.html |
| cytoHubba | National Taiwan University(Cytoscape-plugin) | V0.1 | Cytoscape-plugin voor hub-gen screening via topologische metrieken; RRID: SCR_006556. URL: https://apps.cytoscape.org/apps/cytohubba |
| Cytoscape | Institute for Systems Biology | V3.8.0 | Software voor netwerkvisualisatie en -analyse; RRID: SCR_003032. URL: https://cytoscape.org/ |
| ETCM (Encyclopedia of Traditional Chinese Medicine) | Institute of Chinese Materia Medica, China Academy of Chinese Medical Sciences | V2.0 | Gecureerde database voor TCM-ingrediënten, targets en formules; RRID: Niet beschikbaar. URL: http://www.tcmip.cn/ETCM2/front/#/ |
| GeneCards | Weizmann Institute of Science | — | Integratieve humane gen-database met periodieke hoofdversies en incrementele updates; gegevens opgehaald op 2025-12-15; RRID: Niet beschikbaar. URL: https://www.genecards.org |
| Open Babel | Open Babel development team | — | Dagelijks bijgewerkte gen-fenotype database zonder globale versie; gegevens opgehaald op 2026-02-16; RRID: Niet beschikbaar. URL: https://omim.org |
| OMIM (Online Mendelian Inheritance in Man) | Johns Hopkins University | — | Open-source cheminformatica-toolkit voor conversie van molecuulbestanden; gegevens opgehaald op 2025-12-21; RRID: Niet beschikbaar. URL: https://openbabel.org/ |
| PubChem | National Center for Biotechnology Information (NCBI) | — | Publieke chemische database die continu wordt bijgewerkt zonder vaste globale versie; verbindingsgegevens opgehaald op 2026-02-10; RRID: Niet beschikbaar. URL: https://pubchem.ncbi.nlm.nih.gov |
| PyMOL | Schrödinger, LLC | V2.5 | Software voor visualisatie en rendering van proteïne-ligandstructuren; RRID: SCR_000305. URL: https://pymol.org |
| R software | R Foundation for Statistical Computing | V4.0.3 | Omgeving voor statistische computing en graphics; RRID: SCR_001905. URL: https://cran.r-project.org |
| RCSB PDB | RCSB Protein Data Bank | — | Publiek archief van 3D-proteïnestructuren; elke PDB-entry heeft een onafhankelijke versiebeheer; structuurbestanden opgehaald op 2026-02-03; RRID: SCR_012820. URL: https://www.rcsb.org |
| STRING | ELIXIR | V11.5 | Database van bekende en voorspelde proteïne-proteïne interacties; RRID: SCR_005223. URL: https://string-db.org |
| SymMap | China Academy of Chinese Medical Sciences | V2.0 | Geïntegreerde database die kruidengeneesmiddelen, ingrediënten, targets en symptomen koppelt; RRID: Niet beschikbaar. URL: http://www.symmap.org |
| TCMSP | Northwest A&F University | V2.3 | TCM Systems Pharmacology Database met ingrediënten, targets en ADME-eigenschappen; RRID: Niet beschikbaar. URL: https://old.tcmsp-e.com/tcmsp.php |
| UniProt | European Bioinformatics Institute (EMBL-EBI) | — | Uitgebreide proteïnesequentie- en annotatiedatabase met geplande versies en continue updates; gegevens opgehaald op 2025-12-12; RRID: SCR_002380. URL: https://www.uniprot.org |
| Venny | BioinfoGP, Spanish National Centre for Biotechnology | V2.0 | Webgebaseerde tool voor het genereren van Venn-diagrammen en overlappende gensets; RRID: SCR_016561. URL: https://bioinfogp.cnb.csic.es/tools/venny/index2.0.2.html |
Referenties
- Desmeules F, et al. Rotator cuff tendinopathy diagnosis, nonsurgical medical care, and rehabilitation: a clinical practice guideline. J Orthop Sports Phys Ther. 2025;55(4):235-274.
- Yoshida M, et al. Post-operative rotator cuff integrity, based on Sugaya's classification, can reflect abduction muscle strength of the shoulder. Knee Surg Sports Traumatol Arthrosc. 2018;26(1):161-168.
- Aydın A, et al. The effects of N-acetylcysteine and adipose-derived stem cells on tendon healing in chronic rotator cuff tears: a rabbit model study. BMC Musculoskelet Disord. 2025;26(1):1014.
- Bolam SM, et al. Ethnicity, sex, and socioeconomic disparities in the treatment of traumatic rotator cuff injuries in Aotearoa/New Zealand. J Shoulder Elbow Surg. 2023;32(1):121-132.
- Patel HP, Patel S, Zalin M, Agrawal DK. Calcified vs. non-calcified tendinopathy of the rotator cuff: clinical presentations, prognostic implications, and emerging therapeutic strategies. J Orthop Sports Med. 2025;7(3):379-391.
- Sewpaul Y, et al. Non-steroidal anti-inflammatory drugs and cyclooxygenase-2 inhibitors do not affect healing after rotator cuff repair: a systematic review and meta-analysis. Arthroscopy. 2024;40(3):930-940.e1.
- Hopewell S, et al. Progressive exercise compared with best practice advice, with or without corticosteroid injection, for the treatment of patients with rotator cuff disorders (GRASP): a multicentre, pragmatic, 2 × 2 factorial, randomised controlled trial. Lancet. 2021;398(10298):416-428.
- Kandikattu S, Aavula M, Pisarski T, Parvizi D, Agrawal DK. Effect of metabolic syndrome in the incidence of rotator cuff injury and recovery following surgical repair. J Surg Res (Houst). 2025;8(1):202-210.
- Longo UG, et al. Retear rates after rotator cuff surgery: a systematic review and meta-analysis. BMC Musculoskelet Disord. 2021;22(1):749.
- Siu WS, Ma H, Cheng W, Shum WT, Leung PC. Traditional Chinese medicine for topical treatment of skeletal muscle injury. Pharmaceuticals (Basel). 2023;16(8):1144.
- Jingying G, et al. A comprehensive review of Drynariae rhizoma: botany, traditional applications, and active flavonoid components. J Pharm Pharmacol. 2025;77(10):1319-1337.
- Chen GY, et al. Prediction of Rhizoma Drynariae targets in the treatment of osteoarthritis based on network pharmacology and experimental verification. Evid Based Complement Alternat Med. 2021;2021:5233462.
- Yang G, et al. Total flavonoids of Rhizoma Drynariae enhance bone marrow mesenchymal stem cell-mediated tendon-bone healing by promoting tissue regeneration, angiogenesis, and modulation of cytokine expression. Biology (Basel). 2025;14(11):1593.
- Shen J, et al. Rhizoma Drynariae-derived EV-like particles alleviate osteoporosis by promoting osteogenic differentiation in BMSCs through the activation of the hsa_circ_0001275/miR-422a pathway. Bone. 2025;196:117489.
- Cai L, et al. Hydrogel microspheres loaded with sinomenine and Drynaria rhizome enhance the treatment of rheumatoid arthritis via immune regulation and promoting bone repair. J Nanobiotechnology. 2026;24(1):174.
- Chen GY, et al. Network pharmacology analysis and experimental validation to investigate the mechanism of total flavonoids of Rhizoma Drynariae in treating rheumatoid arthritis. Drug Des Devel Ther. 2022;16:1743-1766.
- Chen GY, et al. Mechanisms of total glucosides of paeony in alleviating methotrexate-induced liver injury. Drug Des Devel Ther. 2025;19:3407-3423.
- Zhang P, et al. Network pharmacology: towards the artificial intelligence-based precision traditional Chinese medicine. Brief Bioinform. 2024;25(1):bbad518.
- Zhao L, et al. Network pharmacology, a promising approach to reveal the pharmacology mechanism of Chinese medicine formula. J Ethnopharmacol. 2023;309:116306.
- Ru J, et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 2014;6:13.
- Xu HY, et al. ETCM: an encyclopaedia of traditional Chinese medicine. Nucleic Acids Res. 2019;47(D1):D976-D982.
- Wu Y, et al. SymMap: an integrative database of traditional Chinese medicine enhanced by symptom mapping. Nucleic Acids Res. 2019;47(D1):D1110-D1117.
- UniProt Consortium. UniProt: the universal protein knowledgebase. Nucleic Acids Res. 2018;46(5):2699.
- Stelzer G, et al. The GeneCards Suite: from gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 2016;54:1.30.1-1.30.33.
- Amberger JS, Hamosh A. Searching Online Mendelian Inheritance in Man (OMIM): a knowledgebase of human genes and genetic phenotypes. Curr Protoc Bioinformatics. 2017;58:1.2.1-1.2.12.
- Szklarczyk D, et al. The STRING database in 2023: protein-protein association networks and functional enrichment analyses for any sequenced genome of interest. Nucleic Acids Res. 2023;51(D1):D638-D646.
- Otasek D, Morris JH, Bouças J, Pico AR, Demchak B. Cytoscape Automation: empowering workflow-based network analysis. Genome Biol. 2019;20(1):185.
- Pitarch B, Chagoyen M, Ranea JAG, Pazos F. A review on Gene Ontology evaluations. Database (Oxford). 2025;2025:baaf058.
- Kanehisa M, Furumichi M, Sato Y, Kawashima M, Ishiguro-Watanabe M. KEGG for taxonomy-based analysis of pathways and genomes. Nucleic Acids Res. 2023;51(D1):D587-D592.
- Kim S, et al. PubChem in 2021: new data content and improved web interfaces. Nucleic Acids Res. 2021;49(D1):D1388-D1395.
- Burley SK, et al. RCSB Protein Data Bank: celebrating 50 years of the PDB with new tools for understanding and visualizing biological macromolecules in 3D. Protein Sci. 2022;31(1):187-208.
- Eberhardt J, Santos-Martins D, Tillack AF, Forli S. AutoDock Vina 1.2.0: new docking methods, expanded force field, and Python bindings. J Chem Inf Model. 2021;61(8):3891-3898.
- Li QR, Han YX, Bian YT, Lan MQ, Chen GY. Unveiling the mechanism of Cibotium barometz in the treatment of rheumatoid arthritis: a study based on network pharmacology and experimental validation. Curr Med Chem. 2026. Online ahead of print.
- Seeliger D, de Groot BL. Ligand docking and binding site analysis with PyMOL and Autodock/Vina. J Comput Aided Mol Des. 2010;24(5):417-422.
- Wang Y, Xu B, Ma C, Huang D, Zhou L. Association between inflammatory proteins and rotator cuff tears: a bidirectional Mendelian randomization study. Sci Rep. 2025;15(1):26987.
- Wang KC, et al. The influence of age on cellular senescence in injured versus healthy muscle and its implications on rotator cuff injuries. J Shoulder Elbow Surg. 2025;34(6 Suppl):S117-S126.
- Wellington IJ, et al. Management of failed rotator cuff repairs: a review. Orthop Clin North Am. 2022;53(4):473-482.
- Han L, Wang C, Wang T, Hu Y, Wang H. Total flavonoids of Rhizoma Drynariae improves tendon-bone healing for anterior cruciate ligament reconstruction in mice and promotes the osteogenic differentiation of bone mesenchymal stem cells by the ERR1/2-Gga1-TGF-β/MAPK pathway. Environ Toxicol. 2024;39(1):106-119.
- Chai S, et al. Luteolin rescues postmenopausal osteoporosis elicited by OVX through alleviating osteoblast pyroptosis via activating PI3K-AKT signaling. Phytomedicine. 2024;128:155516.
- Li W, et al. Effects of total flavonoids of Rhizoma Drynariae on biochemical indicators of bone metabolism: a systematic review and meta-analysis. Front Pharmacol. 2024;15:1443235.
- Wang Z, Cao L, Wang X. Total flavonoids of Rhizoma Drynariae ameliorate tendon-bone healing following anterior cruciate ligament reconstruction in rats by activating the FSP1/CoQ10 pathway to inhibit osteoblast mitochondrial dysfunction and ferroptosis. Appl Biochem Biotechnol. 2026;198(8):5916-5938.
- Kim JG, et al. Therapeutic potential of quercetin as an antioxidant for bone-muscle-tendon regeneration and aging. Aging Dis. 2024;16(3):1414-1437.
- Worsfold SI, et al. Rotator cuff tendinopathy: pathways of apoptosis. Sports Med Arthrosc Rev. 2024;32(1):12-16.
- Chen L, et al. AMPK signaling in osteoarthritis: from mechanisms to targeted therapeutics. Front Pharmacol. 2025;16:1681610.
- Li Y, et al. Leptin enhances M1 macrophage polarization and impairs tendon-bone healing in rotator cuff repair: a rat model. Clin Orthop Relat Res. 2025;483(5):939-951.
- Yang Y, et al. Celastrol suppresses neovascularization in rat aortic vascular endothelial cells stimulated by inflammatory tenocytes via modulating the NLRP3 pathway. Open Med (Wars). 2025;20(1):20241121.
- Li Y, et al. Prevascularized bone marrow-derived mesenchymal stem cell sheets promote tendon-bone integration in rotator cuff repair. J Bone Joint Surg Am. 2026;108(17):1389-1398.
- Zhao MJ, et al. Eupatorin as a promising natural compound against knee osteoarthritis: from network pharmacology to experimental validation. Front Biosci (Landmark Ed). 2025;30(12):46747.
- Cho W, et al. Valdecoxib ameliorates apoptosis and ferroptosis in tenocytes via the SIRT6/NRF2-mediated suppression of oxidative stress. Arch Med Res. 2025;56(6):103231.
- Cheng Y, et al. Amentoflavone alleviated cartilage injury and inflammatory response of knee osteoarthritis through PTGS2. Naunyn Schmiedebergs Arch Pharmacol. 2024;397(11):8903-8916.
- Cho W, et al. Therapeutic potential of ginsenoside compound K in managing tenocyte apoptosis and extracellular matrix damage in diabetic tendinopathy. Tissue Cell. 2024;86:102275.
- Cheng P, et al. High-purity magnesium screws modulate macrophage polarization during the tendon-bone healing process in the anterior cruciate ligament reconstruction rabbit model. Regen Biomater. 2022;9:rbac067.
- Zhou L, et al. Regorafenib attenuates osteoclasts differentiation by inhibiting the NF-κB, NFAT, ERK, and p38 signaling pathways. ACS Omega. 2024;9(31):33574-33593.
- Cho MH, Jin H, Ha J, Chu S, An S. An integrated systems pharmacology approach combining bioinformatics, untargeted metabolomics and molecular dynamics to unveil the anti-aging mechanisms of Tephroseris flammea. Biomolecules. 2025;15(12):1740.
- Wang L, et al. IL-33/ST2 drives inflammatory pain via CCL2 signaling and activation of TRPV1 and TRPM8. Commun Biol. 2025;8(1):724.
- Zhang P, Xu X, Wang H, Zhang Y. Anti-inflammatory activity and potential anti-inflammatory mechanisms of Artemisia scoparia essential oil. J Pharm Pharmacol. 2026;78(2):rgag004.
- Wang Z, et al. Engineered mesenchymal stem cells with endogenous trehalose expression activate the NRF2-HMOX1 pathway to enhance antioxidant stress and wound healing capacity. Adv Wound Care (New Rochelle). 2026. Online ahead of print.
- Lu Y, et al. Dual-PPARα/δ agonist H11 alleviates tendinopathy via modulating the Nrf2/HO-1/GPX4 pathway. Free Radic Biol Med. 2026;242:333-344.
- Chung SW, Yoon JP, Park SJ. Inhibiting muscle degeneration in rotator cuff tears: integrative biologic approaches targeting regeneration, fibrosis, and metabolism. Stem Cells Transl Med. 2026;15(6):szag023.
- Feuerriegel GC, et al. Assessment of the rotator cuff muscles: state-of-the-art MRI and clinical implications. Radiology. 2025;315(2):e242131.
- He Y, et al. SHED-derived exosome-mimetics promotes rotator cuff tendon-bone healing via macrophage immunomodulation through NF-κB suppression and autophagy activation. Mater Today Bio. 2025;34:102146.
- Zhang Z, et al. Curcumin improves functional recovery of ruptured tendon by promoting tenogenesis via PI3K/Akt signaling. Stem Cells Transl Med. 2024;13(5):477-489.
- Chen C, et al. CTHRC1 attenuates tendinopathy via enhancing EGFR/MAPK signaling pathway. Adv Sci (Weinh). 2024;11(47):e2406611.
- Zulkifli A, et al. The potential mechanism of hypoxia-induced tenogenic differentiation of mesenchymal stem cell for tendon regeneration. Tissue Cell. 2023;82:102075.
- Xiang L, Deng H, Zhou S. Effects of TNF-α on behaviour and inflammation in rats with rotator cuff injury through NGF. Discov Med. 2024;36(185):1241-1249.
- Liu H, et al. RNA-sequencing-based elucidation of the mechanism underlying aFGF mediated regulation of BMSCs via the PI3K-AKT pathway and its implications for rotator cuff injury repair. J Orthop Surg Res. 2025;20(1):997.
- Chen GY, et al. Total flavonoids of Rhizoma Drynariae restore the MMP/TIMP balance in models of osteoarthritis by inhibiting the activation of the NF-κB and PI3K/AKT pathways. Evid Based Complement Alternat Med. 2021;2021:6634837.
- Wang Y, Gu X, Tu J, Xu B. MCP-1 exacerbates diabetic rotator cuff tear by driving synovial inflammation via MAPK/ERK-mediated macrophage polarization. J Shoulder Elbow Surg. 2026. Online ahead of print.
- Lin J, et al. Hypobaric hypoxia ameliorates impaired regeneration after diabetic skeletal muscle injury by promoting HIF-1α signaling. Int J Mol Sci. 2026;27(2):648.
- Tian M, Wang K, Chen D. Efficacy and mechanisms of Xiangsha Liujunzi Decoction for gastroesophageal reflux disease: a study integrating meta-analysis, network pharmacology and molecular docking. Phytomedicine. 2026;151:157766.