Deze review onderzoekt diabetes-geassocieerde enterische neuropathie als een segmentspecifieke, multicellulaire beschadiging die metabole stress, redox-onevenwicht, immuun- en gliale remodellering, trofisch falen en verstoorde neuromusculaire coördinatie koppelt aan gastro-intestinale dysfunctie.
Reviewartikel
Diabetes-geassocieerde enterische neuropathie: een over het hoofd geziene drijfveer van gastro-intestinale dysfunctie
In dit artikel
Samenvatting
Samenvatting
Diabetes mellitus gaat vaak gepaard met gastro-intestinale symptomen, maar deze symptomen worden niet volledig verklaard door extrinsieke autonome neuropathie en mogen niet worden gelijkgesteld aan een enkele enterische laesie. Biopten en motiliteitsstudies bij mensen, aangevuld met experimentele modellen, wijzen erop dat het enterische zenuwstelsel (ENS) en de bijbehorende neuromusculaire niche op segment- en cel-specifieke wijze kunnen worden beschadigd. Bewijs bij mensen ondersteunt gastrische veranderingen in de interstitiële cellen van Cajal (ICC) en macrofagen, en enterisch neuronaal verlies in het colon geassocieerd met oxidatieve stress; plexus-specifieke mechanismen en herstelmechanismen zijn hoofdzakelijk afgeleid van dierstudies of in vitro studies. Terugkerend geïmpliceerde routes omvatten redox-onbalans, immuunremodellering, verminderde glial cell line-derived neurotrophic factor (GDNF)-phosphoinositide 3-kinase (PI3K)/Akt-signalering, enterische gliale stress en microbiota-metaboliet-signalering. Myenterische beschadiging is het meest direct gekoppeld aan dysmotiliteit, terwijl submucosale beschadiging de secretie, barrièrefunctie en lokale neuro-immuuncontrole kan beïnvloeden. De huidige zorg blijft symptoomgericht. Heemoxygenase-1, interleukine-10, neurotrofe redding, nicotinamide riboside, 5-hydroxytryptamine 4 receptor agonisme, microbiota-afgeleid butyraat en extracellulaire blaasjes zijn experimentele en geen gevestigde ziekte-modificerende therapieën. Segment-specifieke biomarkers en humane translationele modellen zijn nodig om cellulaire beschadiging te koppelen aan symptomen en behandelrespons.
Inleiding
Gastro-intestinale symptomen bij diabetes komen vaak voor, zijn langdurig en komen vaak niet overeen met routineklinische tests. Ze worden frequent beschreven als diabetische autonome neuropathie of diabetische gastroenteropathie, termen die klinisch handig zijn maar biologisch onvolledig. Recente reviews hebben enterische neuropathie binnen het spectrum van diabetische gastro-intestinale aandoeningen geplaatst en betogen dat schade aan enterische circuits moet worden meegewogen naast vagale en sympathische beschadiging1,2,3,4,5.
Maag-darmklachten komen vaker voor bij volwassenen met diabetes dan in populatiecontroles, vooral wanneer de glykemische controle onvoldoende is, maar de prevalentie van symptomen is niet hetzelfde als bevestigde gastroparese of histologische enterische neuropathie6. In een gemeenschapscohort was het cumulatieve risico over 10 jaar op strikt gedefinieerde gastroparese 5,2% bij diabetes type 1 en 1,0% bij diabetes type 2, vergeleken met 0,2% in de controlegroep7. Dit epidemiologische onderscheid voorkomt dat veelvoorkomende symptomen van de boven- of ondermaag-darmtractus worden geïnterpreteerd als bewijs voor een enkele neuropathische laesie.
Gastroparese illustreert dit probleem. Het wordt gedefinieerd door symptomen van de bovenste gastro-intestinale tractus, vertraagde maaglediging en de afwezigheid van mechanische obstructie8. Toch lopen symptomen, ledigingssnelheid en histologie niet altijd parallel. Patiënten met diabetes type 1 en type 2 kunnen verschillen in de ernst van de symptomen en de longitudinale uitkomsten9. Onderzoeken met draadloze motiliteitscapsules tonen verder aan dat dysmotiliteit zich kan uitstrekken voorbij de maag en ook de transit in de dunne darm en colon, evenals de contractiliteit, kan beïnvloeden10,1. Diarree is eveneens multifactorieel en weerspiegelt bij sommige patiënten neuropathische secretie of motiliteit, terwijl het bij anderen het gevolg is van medicatie-effecten, infecties, galzuurmalabsorptie, bacteriële overgroei in de dunne darm, pancreasininsufficiëntie of gemengde oorzaken12.
Deze review richt zich op diabetes-gerelateerde enterische neuropathie als een fenomeen op cel- en circuitniveau, in plaats van als een volledige catalogus van gastro-intestinale diabetesziekten. Metabole schade kan enterische neuronen, enterische glia, immuuncellen, ICC en gladde spieren op regio-specifieke wijze veranderen. Diabetes-gerelateerde enterische neuropathie moet daarom worden beschouwd als een multicellulare neuromusculaire aandoening en niet enkel als een late manifestatie van autonome neuropathie. Figuur 1 vat dit op bewijzen gebaseerde kader samen en maakt onderscheid tussen vastgestelde menselijke observaties en mechanismen en herstelstrategieën die hoofdzakelijk worden ondersteund door experimentele modellen.
Review en perspectief
Klinisch fenotype: meer dan vertraagde maaglediging
Diabetische gastroparese vormt vaak het startpunt voor discussies over gastro-intestinale ziekten bij diabetes. Misselijkheid, braken, vroegtijdige verzadiging, postprandiale volheid, een opgeblazen gevoel, pijn en instabiele glycemische schommelingen worden gewoonlijk toegeschreven aan maagdysfunctie. De richtlijn van het American College of Gastroenterology definieert gastroparese op basis van symptomen plus objectief vastgestelde vertraagde maaglediging in afwezigheid van een mechanische obstructie8. Voor een op het ENS gerichte review is die diagnose beschrijvend in plaats van verklarend. Een test voor vertraagde lediging toont een abnormale motorische output van de maag aan, maar identificeert niet of het defect primair ligt bij de enterische neuronen, ICC, macrofagen, gladde spieren, extrinsieke zenuwen, de pylorusfunctie, glucoseschommelingen of een combinatie van deze factoren.
Darmfenotypes zijn vergelijkbaar divers. Obstipatie bij diabetes is vaak gekoppeld aan een trage colone transit, maar mobiliteitsstudies met capsules tonen aan dat contractiliteit en transit per darmregio kunnen variëren, waardoor er niet van één enkel patroon moet worden uitgegaan1. Diabetische diarree is mechanistisch gezien eveneens gemengd. De aanduiding kan neuropathische secretie of motiliteit, effecten van behandelingen en andere diabetes-geassocieerde aandoeningen omvatten12. Een segmentale benadering is daarom noodzakelijk. Het ENS is continu langs het darmkanaal, maar enterische neuronen bevinden zich in verschillende lokale omgevingen in de maag, dunne darm, dikke darm en het rectum.
Symptomen mogen niet worden gebruikt als een directe index voor het verlies van enterische neuronen. Een patiënt met ernstige misselijkheid kan een vertraagde, normale of snelle maaglediging hebben. Een patiënt met constipatie kan sprake hebben van een trage transit, zwakke contractiliteit, een verstoorde evacuatie, medicatieveffecten of meerdere gelijktijdige oorzaken. Enterische neuropathie geassocieerd met diabetes wordt het beste beschouwd als één pathologie binnen het bredere spectrum van diabetische gastro-intestinale aandoeningen, en niet als een diagnose die elk symptoom verklaart.
Regionale en plexus-specifieke heterogeniteit
Het enterisch zenuwstelsel (ENS) is hoofdzakelijk georganiseerd in myenterische en submucose plexussen. De myenterische plexus bevindt zich tussen de circulaire en longitudinale spierlagen en coördineert primair de propulsieve en sfincter-motorische patronen. De submucose plexus reguleert directer de mucosale secretie, absorptie, lokale bloedstroom en barrière-neuro-immuunsignalering. Diabetes kan beide plexussen beïnvloeden, maar het bewijs is inconsistent: menselijke studies hebben voornamelijk monsters genomen van de gastrische muscularis en colonic full-thickness weefsel, terwijl de meeste vergelijkingen met plexus-resolutie afkomstig zijn uit experimentele modellen13,14,15.
Neuronale kwetsbaarheid is niet beperkt tot één enkele chemische klasse. In de menselijke diabetische dikke darm ging het verlies van peripherine-, neuronale stikstofmonoxide-synthase (nNOS)-, neuropeptide Y (NPY)- en choline-acetyltransferase (ChAT)-positieve neuronen gepaard met oxidatieve stress en een verminderde contractie en relaxatie, terwijl de kleuring voor vasoactief intestinaal peptide relatief behouden bleef13. Bij diabetische knaagdieren is oxidatieve en nitrosatieve stress geassocieerd met veranderingen in HuC/D-, nNOS- en calretinine-positieve myenterische populaties langs de axis duodenum-jejunum-ileum14, en submucosale vasoactief intestinaal peptide-positieve neuronen en calcitonine-gen-gerelateerd peptide-vezels kunnen eveneens remodelleren15. Nitrergische neuronen zijn herhaaldelijk geïmpliceerd, maar de vatbaarheid varieert per regio, ziekteduur, model en marker; huidig bewijs ondersteunt het labelen van één enkele 'meest getroffen' neuronale populatie niet.
Deze verschillen hebben functionele implicaties. Beschadiging van de gastrische myenterische ICC-macrofagen kan de antrale-pylorische coördinatie en accommodatie belemmeren; myenterische beschadiging in de dunne darm kan de peristalsiek veranderen, terwijl submucosale beschadiging de secretie en barrièrefunctie kan wijzigen; en het verlies van myenterische neuronen in de dikke darm kan de contractie en relaxatie belemmeren en bijdragen aan constipatie of een abnormale transit. Experimentele gegevens tonen segmentspecifieke inductie van interleukine-1 bèta aan in nNOS-positieve colone myenterische neuronen versus calcitonine-gen-gerelateerd peptide-positieve ileale myenterische neuronen16, wat de opvatting versterkt dat diabetes-geassocieerde enterische neuropathie een verzameling regionale laesies is in plaats van een uniform pan-enterisch proces. Directe menselijke vergelijkingen tussen plexus en darmsegmenten blijven een belangrijke lacune.
Bewijsmateriaal van menselijk weefsel: een gemengde cellulaire laesie
Studies naar menselijk weefsel hebben de classificatie van diabetische gastroparese verschoven van een puur functioneel label naar een cellulaire aandoening. Volledig dikke gastrische biopsieën van patiënten met diabetische en idiopathische gastroparese vertoonden een verminderde hoeveelheid ICC, abnormaliteiten in de enterische zenuwen en veranderingen in immuuncellen17. Latere klinisch-histologische analyse door het Gastroparesis Clinical Research Consortium koppelde cellulaire bevindingen aan symptomen en maaglediging, maar de associaties waren niet specifiek genoeg om een enkele histologische marker voor de ernst van de ziekte te ondersteunen18.
Macrofagen zijn waarschijnlijk geen passieve omstanders. Lage aantallen CD206-positieve cellen in het corpus ventriculi waren geassocieerd met ICC-verlies bij diabetische gastroparese19. Een vergelijkbaar verlies van CD206-positieve macrofagen werd later gerapporteerd in het antrum ventriculi van patiënten met diabetische en idiopathische gastroparese20. Deze bevindingen zijn consistent met diergegevens die het macrofaagfenotype koppelen aan de integriteit van ICC en de maaglediging, en ze suggereren een neuromusculaire niche waarin immuunregulatie de overleving van neuronen kan beïnvloeden.
Gladde spieren en stromale componenten kunnen mogelijk ook betrokken zijn. In chirurgische preparaten van patiënten met diabetes rapporteerden onderzoekers veranderingen in gladde spieren, enterische zenuwen, ICC en fibroblast-achtige cellen die positief zijn voor de platelet-derived growth factor receptor-alpha21. Deze waarnemingen betekenen niet dat alle patiënten dezelfde laesie delen. Integendeel, ze tonen aan dat de diabetische maag beschadigd kan raken via verschillende interagerende celtypen. Enterische neuronen maken deel uit van dit multicellulaire netwerk en worden beïnvloed door nabijgelegen ICC, glia, macrofagen en spierweefsel.
Metabole beschadiging en redoxstress
Hyperglykemie beschadigt het ENS niet via één enkel pad. Oxidatieve stress is een gemeenschappelijk kenmerk in diverse modellen en menselijk weefsel. Het verlies van heemoxygenase-1 (HO-1) bij diabetische muizen is geassocieerd met oxidatieve stress, uitputting van ICC en vertraagde maaglediging, terwijl inductie van HO-1 de ICC beschermde en de vertraagde lediging herstelde2. Koolmonoxide, een product van HO-1-activiteit, heeft beschermende effecten getoond bij niet-obese diabetische muizen23. Interleukine-10 (IL-10) bevordert een cytoprotectief macrofaagprogramma en HO-1-expressie; bij diabetische muizen herstelde dit pad de maaglediging, de elektrische activiteit en de ICC-netwerken24. Latere gegevens uit muisstudies ondersteunden verder het concept dat verschuivingen in de macrofaagpopulatie een vertraagde maaglediging kunnen bevorderen25.
Gegevens van de menselijke dikke darm breiden het redoxverhaal uit voorbij de maag. Colonmonsters van personen met diabetes vertoonden motorische dysfunctie geassocieerd met verlies van enterische neuronen, apoptose en verhoogde markers voor oxidatieve stress13. Deze studie bewees niet dat oxidatieve stress de enige oorzaak is van het neuronale verlies. Het toonde wel aan dat neuronale beschadiging, oxidatieve stress en motorische defecten van de dikke darm gelijktijdig kunnen voorkomen bij mensen met diabetes.
Redox-schade kan mogelijk ook verklaren waarom ENS-dysfunctie kan aanhouden. Wanneer de neuronale signalering, ICC-netwerken, het macrofaagfenotype en de spiercontractiliteit uit balans zijn, kan een kortstondige metabole insult een langdurige functionele afdruk achterlaten. Dit betekent niet dat de ziekte onomkeerbaar is, maar het suggereert dat glykemische controle alleen mogelijk onvoldoende is nadat de neuromusculaire niche is herstructureerd.
Neurotrofisch falen en neuronale plasticiteit
Glial cell line-derived neurotrophic factor (GDNF) heeft beschermende effecten in metabool gestreste enterische neuronen. In primaire culturen van enterische neuronen remde GDNF het door hyperglykemie geïnduceerde neuronale verlies via activatie van het fosfoïnositide 3-kinase (PI3K)/Akt-pad26. Diabetische ratten vertonen eveneens enterisch neuronaal verlies, een afname van de GDNF-expressie en een verminderde activiteit van het PI3K/Akt-pad27. Deze experimentele studies ondersteunen een testbare keten waarin een hoog glucosegehalte de overlevingssignalering vermindert en de neuronale kwetsbaarheid vergroot, maar ze stellen de effectiviteit van GDNF-gebaseerde therapie bij mensen niet vast.
Bewijs voor enterische neurale bescherming en herstel blijft voornamelijk preklinisch. Hoogfrequente elektroacupunctuur op ST36 induceerde regeneratie van verloren gegane enterische neuronen in diabetische ratten via GDNF-PI3K/Akt-signalering28. Nicotinamide-riboside verminderde enterische neuropathie in streptozotocine-geïnduceerde diabetische ratten door de myenterische plexus te beschermen29, en een 5-hydroxytryptamine 4 (5-HT4) receptoragonist verminderde diabetische enterische neuropathie bij muizen door receptor-interacting protein kinase 3-gemedieerde celdood te onderdrukken30. Microvesikels van uit het beenmerg afgeleide mesenchymale stamcellen verbeterden de overleving van enterische neurale precursorcellen, de ENS-structuur en de motiliteit bij diabetische muizen; dezelfde studie documenteerde vertraagde transit en een gewijzigde ENS-structuur bij patiënten, maar testte de behandeling met microvesikels niet bij mensen31.
Deze studies hebben geen routinematige klinische behandelingen voor diabetische enterische neuropathie vastgesteld. Ze dagen echter wel het standpunt uit dat het enterische zenuwstelsel (ENS) bij volwassenen louter degeneratief is zodra het beschadigd is. Enterische neuronen en hun precursorcellen kunnen reageren op trofische, metabole, inflammatoire en blaasjes-gemedieerde signalen. De volgende stap is het ontwikkelen van menselijke biomarkers die kunnen aantonen of een herstelsignaal het ENS bereikt en of dit de symptomen of de motiliteit beïnvloedt.
Glia, microbiota en regionale kwetsbaarheid
Enterische neuronen falen niet onafhankelijk van elkaar. Enterische glia reguleren de epitheliale barrièrefunctie, neurotransmissie, immuunsignalering en neuronale ondersteuning. Diabetesgerelateerde veranderingen in de micro-omgeving van het ENS omvatten gewijzigde trofische ondersteuning, kwetsbaarheid van nitrerge neuronen, regio-afhankelijk neuronaal verlies en veranderingen in de lokale cellulaire niche32. Een micro-omgevingsperspectief helpt verklaren waarom verschillende darmsegmenten verschillend kunnen reageren op dezelfde systemische metabole ziekte.
Recent werk in modellen voor type 1 diabetes suggereert dat de darmstengte en segmentspecifieke structuur beïnvloeden hoe hyperglykemie enterische neuronen verandert3. Dit helpt verklaren waarom maaglediging, transit in de dunne darm, colone transit en anorectale functies in verschillende combinaties abnormaal kunnen zijn bij dezelfde patiënt. Een enkele biopsieplaats, motiliteitstest of darmsegment van een dier mag daarom niet worden beschouwd als representatief voor het gehele maag-darmkanaal.
Gliale en immuunveranderingen zijn minder duidelijk gedefinieerd dan neuronale en ICC-abnormaliteiten. Sommige studies leggen de nadruk op macrofaagdifferentiatie; andere onderzoeken het aantal gliacellen, trofische factoren en oxidatieve stress. Dit zijn geen concurrerende verklaringen, maar verschillende inzichten in dezelfde neuromusculaire niche. Huidig bewijs wijst erop dat diabetes de omgeving aanpast die enterische neuronen ondersteunt en coördineert, en dat deze omgeving varieert langs het darmkanaal.
De intestinale microbiota is waarschijnlijk een modifier in plaats van een vastgestelde oorzaak van diabetes-geassocieerde enterische neuropathie. Bij niet-diabetische, met antibiotica behandelde muizen veroorzaakte microbiële uitputting neuronaal verlies in zowel de myenterische als de submucosale plexussen in het ileum en het proximale colon; reconstitutie van de microbiota of kortketenige vetzuren herstelden de neuronenaantallen en aspecten van de intestinale functie34. Directer nog wees een geïntegreerde studie uit 2026 bij mensen en muizen op dysbiose die geassocieerd was met de ernst van gastro-intestinale autonome neuropathie; fecale microbiotatransfer van aangedane patiënten verergerde dysmotiliteit en apoptose van ChAT-positieve en nNOS-positieve myenterische neuronen in db/db-muizen, terwijl butyraat afgeleid van Faecalibacterium prausnitzii neuroprotectief was in experimentele systemen35. Deze bevindingen ondersteunen een microbiota-ENS-as, maar menselijke causaliteit en therapeutisch voordeel blijven onbewezen, en dieet, medicatie, diabetesfenotype en de transit zelf zijn belangrijke confounders.
Implicaties voor de behandeling
De huidige behandeling begint nog steeds met symptoombestrijding. Dieetaanpassingen, glykemische regulatie, antiemetica, prokinetica, behandeling van constipatie, beoordeling van diarree en nutritionele ondersteuning blijven essentieel8,36,37,38. Pylorus-gerichte therapie, apparaattherapie en farmacologische opties kunnen geselecteerde patiënten met gastroparese helpen, hoewel de bewijskwaliteit en de respons variabel zijn8,39. Deze benaderingen kunnen de zorg verbeteren, maar ze beoordelen of corrigeren letsel aan het ENS niet rechtstreeks.
Een plan gebaseerd op het ENS zou drie vragen toevoegen aan de routinematige beoordeling. Ten eerste: welk darmsegment is verantwoordelijk voor de primaire beperking van de patiënt? Ten tweede: is het dominante mechanisme motorisch falen, sensorische dysfunctie, secretie, immuunactivatie, een medicatie-effect, of een combinatie hiervan? Ten derde: verlicht een voorgestelde interventie enkel de symptomen, of ondersteunt deze ook het herstel van het aangetaste neuromusculaire systeem? Deze vragen zijn minder eenvoudig dan het brede label diabetische gastro-enteropathie, maar ze liggen dichter bij het biologische probleem.
Er zijn verschillende experimentele herstelrichtingen naar voren gekomen. De heme-oxygenase-1 (HO-1) en interleukine-10 (IL-10) signaalpaden ondersteunen de redoxcontrole en macrofaagherprogrammering bij diabetische muizen22,23,24,25. Gegevens over GDNF-PI3K/Akt ondersteunen neurotrofisch herstel in cel- en knaagdiermodellen26,27,28. Nicotinamide-riboside, 5-HT4 receptor-signalering, extracellulaire blaasjes en microbiota-afgeleid butyraat wijzen op metabole ondersteuning, regulatie van celdood, bescherming van precursorcellen en neuro-immuunmodulatie29,30,31,35. Geen van deze benaderingen is een gevestigde ziekte-modificerende behandeling voor humane diabetes-geassocieerde enterische neuropathie. Toekomstig onderzoek dient symptomen en regionale motiliteitsuitkomsten te koppelen aan biomarkers van neurale, gliale, ICC, immuun- en microbiële-metabolietbeschadiging.
Open vragen
Verschillende tekortkomingen beperken het vakgebied. Menselijk weefsel is moeilijk te verkrijgen en is hoofdzakelijk gastrisch. Motiliteitstests identificeren regionale dysfunctie, maar onthullen de cellulaire laesie niet. Symptomen zijn essentieel voor de klinische zorg, maar zijn zwakke indicatoren voor de structuur van het ENS. Diermodellen reproduceren geselecteerde kenmerken van diabetische enteropathie, maar verschillen in diabetestype, ziekteduur, microbiota, dieet en geslacht. Deze verschillen kunnen verklaren waarom een mechanisme in het ene model sterk lijkt en in een ander model minder consistent is.
De belangrijkste translationele behoefte is de ontwikkeling van biomarkers. Bloedmarkers voor oxidatieve stress en inflammatie zullen waarschijnlijk op zichzelf niet specifiek genoeg zijn. Beeldvorming, read-outs van het slijmvlies of weefsel over de gehele dikte, signaturen van circulerende extracellulaire blaasjes, transit-fenotypering en neurofysiologisch onderzoek kunnen allemaal nodig zijn. Het doel is niet een perfecte diagnostische index, maar een praktische manier om patiënten te classificeren op basis van behandelingsrelevante biologie: dominante gastrische neuromusculaire beschadiging, pan-intestinale dysmotiliteit, colonische neuropathische dysfunctie of een gemengde aandoening die niet primair wordt gedreven door neurale beschadiging.
Conclusies
Enterische neuropathie geassocieerd met diabetes biedt een gerichte manier om een deel van de gastro-intestinale ziekten bij diabetes te begrijpen. Onderzoeken naar menselijk weefsel, gegevens over segmentale motiliteit en experimentele modellen leggen een verband tussen hyperglykemie en oxidatieve stress, verschuivingen in macrofagen, disruptie van ICC, verminderde neurotrofe signalering, veranderingen in gliale en microbiota-metabolieten en verlies van enterische neuronen. Het beschikbare bewijs ondersteunt een reeks regionale laesies die myenterische en, minder goed gekarakteriseerde, submucosale circuits beïnvloeden, in plaats van een uniforme pan-enterische neuropathie. Niet elk gastro-intestinaal symptoom bij diabetes wordt veroorzaakt door schade aan het ENS, en symptomen alleen kunnen de laesie niet definiëren. Een op het ENS gecentreerd kader stimuleert niettemin precieze regionale fenotypering en directe meting van neuromusculaire schade. Het vakgebied heeft nu klinisch bruikbare biomarkers nodig, gekoppelde bemonstering over darmregio's en plexussen, betere menselijke modellen en trials die bepalen of het beschermen of herstellen van enterische neurale circuits leidt tot verbeterde patiëntrelevante uitkomsten.
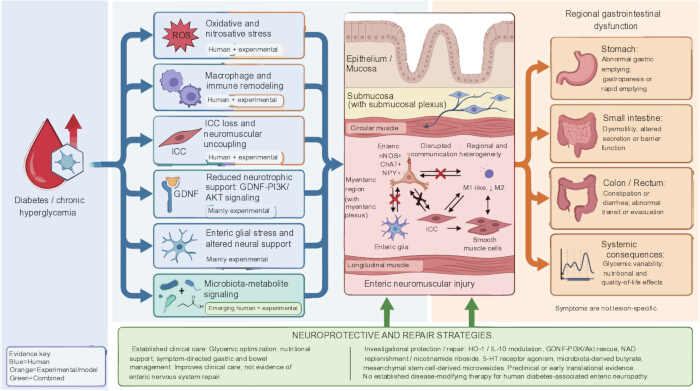
Figuur 1: Segment- en bewijsgestuurd kader van diabetes-geassocieerde enterische neuropathie. Chronische hyperglykemie en diabetes-geassocieerde metabole stress convergeren met oxidatieve en nitrosatieve stress, immuun- en macrofaagremodellering, ICC-verlies, aangetaste GDNF-PI3K/Akt-signalering, enterische gliale stress en microbiota-metaboliet-signalering. Menselijk bewijs is het sterkst voor gastrische ICC/macrofaagafwijkingen en colonic neuronaal verlies geassocieerd met oxidatieve stress; het meeste padspecifieke bewijs en bewijs voor herstel is afkomstig uit experimentele modellen. Het diagram plaatst het submucosale plexus binnen de submucosa en het myenterische plexus tussen de circulaire en longitudinale spierlagen, waarbij ICC een neuromusculair netwerk vormt grenzend aan neuronen en gladde spieren. Regionale beschadiging kan bijdragen aan abnormale maaglediging, dysmotiliteit van de dunne darm of secretie-barrière-dysfunctie, colonic transitstoornissen, diarree, constipatie en glykemische variabiliteit. Gevestigde zorg blijft symptoomgericht, terwijl HO-1/IL-10-modulatie, GDNF-PI3K/Akt-redding, NAD-aanvulling, 5-HT4-receptoractivatie, microbiota-afgeleid butyraat en extracellulaire vesikelbenaderingen experimenteel blijven. Klik hier om een grotere versie van deze figuur te bekijken.
Openbaarmakingen
De auteurs hebben geen belangenconflicten te verklaren. Figuur 1 is gegenereerd met ondersteuning van FigureLabs (https://chat.figurelabs.ai), een AI-ondersteund platform voor wetenschappelijke illustraties. De auteurs hebben de definitieve figuur beoordeeld en goedgekeurd.
AUTEURSBIJDRAGEN:
Zhu Y bedacht de review, voerde het literatuuronderzoek uit, stelde het manuscript op en bereidde de figuur voor. Jiao Y droeg bij aan het conceptuele ontwerp, herzag het manuscript kritisch op belangrijke intellectuele inhoud en hield toezicht op de studie. Liu Q bedacht de studie, hield toezicht op het totale project, herzag het manuscript kritisch en keurde de definitieve versie goed. Alle auteurs hebben het definitieve manuscript beoordeeld, herzien en goedgekeurd, en gaan ermee akkoord verantwoordelijk te zijn voor alle aspecten van het werk
Referenties
- Abdalla, M. M. I. Enteric neuropathy in diabetes: Implications for gastrointestinal function. World J. Gastroenterol. 30 (22), 2852-2865 (2024).
- Bharucha, A. E., Kudva, Y. C. & Prichard, D. O. Diabetic gastroparesis. Endocr. Rev. 40 (5), 1318-1352 (2019).
- Chandrasekharan, B. & Srinivasan, S. Diabetes and the enteric nervous system. Neurogastroenterol. Motil. 19 (12), 951-960 (2007).
- Yarandi, S. S. & Srinivasan, S. Diabetic gastrointestinal motility disorders and the role of enteric nervous system: Current status and future directions. Neurogastroenterol. Motil. 26 (5), 611-624 (2014).
- Azpiroz, F. & Malagelada, C. Diabetic neuropathy in the gut: Pathogenesis and diagnosis. Diabetologia. 59 (3), 404-408 (2016).
- Bytzer, P. et al. Prevalence of gastrointestinal symptoms associated with diabetes mellitus: A population-based survey of 15,000 adults. Arch. Intern. Med. 161 (16), 1989-1996 (2001).
- Choung, R. S. et al. Risk of gastroparesis in subjects with type 1 and 2 diabetes in the general population. Am. J. Gastroenterol. 107 (1), 82-88 (2012).
- Camilleri, M. et al. ACG clinical guideline: Gastroparesis. Am. J. Gastroenterol. 117 (8), 1197-1220 (2022).
- Koch, K. L. et al. Baseline features and differences in 48-week clinical outcomes in patients with gastroparesis and type 1 versus type 2 diabetes. Neurogastroenterol. Motil. 28 (7), 1001-1015 (2016).
- Sangnes, D. A. et al. Wireless motility capsule compared with scintigraphy in the assessment of diabetic gastroparesis. Neurogastroenterol. Motil. 32 (4), e13771 (2020).
- Sangnes, D. A. et al. Gastrointestinal transit and contractility in diabetic constipation: A wireless motility capsule study on diabetes patients and healthy controls. United Eur. Gastroenterol. J. 9 (10), 1168-1177 (2021).
- Selby, A., Reichenbach, Z. W., Piech, G. & Friedenberg, F. K. Pathophysiology, differential diagnosis, and treatment of diabetic diarrhea. Dig. Dis. Sci. 64 (12), 3385-3393 (2019).
- Chandrasekharan, B. et al. Colonic motor dysfunction in human diabetes is associated with enteric neuronal loss and increased oxidative stress. Neurogastroenterol. Motil. 23 (2), 131-138, e26 (2011).
- Ferreira, P. E. B., Beraldi, E. J., Borges, S. C., Natali, M. R. M. & Buttow, N. C. Resveratrol promotes neuroprotection and attenuates oxidative and nitrosative stress in the small intestine in diabetic rats. Biomed. Pharmacother. 105, 724-733 (2018).
- Tashima, C. M., Hermes-Uliana, C., Perles, J. V. C. M., de Miranda Neto, M. H. & Zanoni, J. N. Vitamins C and E (ascorbate/alpha-tocopherol) provide synergistic neuroprotection in the jejunum in experimental diabetes. Pathophysiology. 22 (4), 241-248 (2015).
- Al Doghmi, A. et al. Gut region-specific interleukin-1 beta induction in different myenteric neuronal subpopulations of type 1 diabetic rats. Int. J. Mol. Sci. 24 (6), 5804 (2023).
- Grover, M. et al. Cellular changes in diabetic and idiopathic gastroparesis. Gastroenterology. 140 (5), 1575-1585.e8 (2011).
- Grover, M. et al. Clinical-histological associations in gastroparesis: Results from the Gastroparesis Clinical Research Consortium. Neurogastroenterol. Motil. 24 (6), 531-539, e249 (2012).
- Bernard, C. E. et al. Association of low numbers of CD206-positive cells with loss of ICC in the gastric body of patients with diabetic gastroparesis. Neurogastroenterol. Motil. 26 (9), 1275-1284 (2014).
- Grover, M. et al. Diabetic and idiopathic gastroparesis is associated with loss of CD206-positive macrophages in the gastric antrum. Neurogastroenterol. Motil. 29 (6), e13018 (2017).
- Park, K. S. et al. Characterization of smooth muscle, enteric nerve, interstitial cells of Cajal, and fibroblast-like cells in the gastric musculature of patients with diabetes mellitus. World J. Gastroenterol. 22 (46), 10131-10139 (2016).
- Choi, K. M. et al. Heme oxygenase-1 protects interstitial cells of Cajal from oxidative stress and reverses diabetic gastroparesis. Gastroenterology. 135 (6), 2055-2064.e2 (2008).
- Kashyap, P. C. et al. Carbon monoxide reverses diabetic gastroparesis in NOD mice. Am. J. Physiol. Gastrointest. Liver Physiol. 298 (6), G1013-G1019 (2010).
- Choi, K. M. et al. Interleukin-10 restores gastric emptying, electrical activity, and interstitial cells of Cajal networks in diabetic mice. Cell Mol. Gastroenterol. Hepatol. 2 (4), 454-467 (2016).
- Cipriani, G. et al. Change in populations of macrophages promotes development of delayed gastric emptying in mice. Gastroenterology. 154 (8), 2122-2136.e12 (2018).
- Anitha, M. et al. GDNF rescues hyperglycemia-induced diabetic enteric neuropathy through activation of the PI3K/Akt pathway. J. Clin. Invest. 116 (2), 344-356 (2006).
- Du, F., Wang, L., Qian, W. & Liu, S. Loss of enteric neurons accompanied by decreased expression of GDNF and PI3K/Akt pathway in diabetic rats. Neurogastroenterol. Motil. 21 (11), 1229-e114 (2009).
- Du, F. & Liu, S. Electroacupuncture with high frequency at acupoint ST36 induces regeneration of lost enteric neurons in diabetic rats via the GDNF and PI3K/Akt signaling pathway. Am. J. Physiol. Regul. Integr. Comp. Physiol. 309 (2), R109-R118 (2015).
- Costa, C. J., Cohen, M. W., Goldberg, D. C., Mellado, W. & Willis, D. E. Nicotinamide riboside improves enteric neuropathy in streptozotocin-induced diabetic rats through myenteric plexus neuroprotection. Dig. Dis. Sci. 68 (7), 2963-2974 (2023).
- Cheng, Y. et al. 5-Hydroxytryptamine 4 receptor agonist attenuates diabetic enteric neuropathy through inhibition of the receptor-interacting protein kinase 3 pathway. Am. J. Pathol. 194 (5), 785-795 (2024).
- Shi, H. et al. BM-derived mesenchymal stem cell microvesicles protect enteric neural precursor cells and alleviate diabetes-associated enteric neuropathy. J. Clin. Invest. 136 (6), e192437 (2026).
- Bagyánszki, M. & Bódi, N. Diabetes-related alterations in the enteric nervous system and its microenvironment. World J. Diabetes. 3 (5), 80-93 (2012).
- Bagyánszki, M. & Bódi, N. Key elements determining the intestinal region-specific environment of enteric neurons in type 1 diabetes. World J. Gastroenterol. 29 (18), 2704-2716 (2023).
- Vicentini, F. A. et al. Intestinal microbiota shapes gut physiology and regulates enteric neurons and glia. Microbiome. 9 (1), 210 (2021).
- Guo, L. et al. Neuroprotective role of Faecalibacterium prausnitzii-derived butyrate in diabetic gastrointestinal autonomic neuropathy. J. Genet. Genomics. In press (2026). doi: 10.1016/j.jgg.2026.06.005.
- Meldgaard, T. et al. Diabetic enteropathy: From molecule to mechanism-based treatment. J. Diabetes Res. 2018, 3827301 (2018).
- Meldgaard, T. et al. Pathophysiology and management of diabetic gastroenteropathy. Ther. Adv. Gastroenterol. 12, 1756284819852047 (2019).
- Törnblom, H. Treatment of gastrointestinal autonomic neuropathy. Diabetologia. 59 (3), 409-413 (2016).
- Grover, M., Farrugia, G. & Stanghellini, V. Gastroparesis: A turning point in understanding and treatment. Gut. 68 (12), 2238-2250 (2019).