Deze studie heeft tot doel de potentiële moleculaire mechanismen te onderzoeken die ten grondslag liggen aan de antioxidant- en ontstekingsremmende effecten van amygdaline in het alopecia areata-model in C3H/HeJ-muizen en in een menselijk primair epidermaal melanocyt-beschadigingsmodel geïnduceerd door H2O2.
Onderzoeksartikel
Amygdaline reguleert FOXO3a-signalering om oxidatieve stress te remmen en alopecia areata bij muizen te verbeteren
* These authors contributed equally
In dit artikel
Samenvatting
Samenvatting
Dit artikel heeft tot doel het mechanisme van het therapeutische effect van amygdaline (AMG) op alopecia areata (AA) te onderzoeken. Hematoxyline-eosin-kleuring werd gebruikt om de hepatorenale toxiciteit van AMG te onderzoeken. Na het opzetten van het AA-model in C3H/HeJ-muizen en H2O2-beschadigde humane primaire epidermale melanocyten (HPEMs), en na interventie met AMG, werden het gehalte aan reactieve zuurstofcomponenten (ROS) en de niveaus van het forkhead box O3A (FOXO3a) eiwit en gen gemonitord. Biochemische kits of enzyme-linked immunosorbent assay werden gebruikt om de gehaltes van superoxide dismutase (SOD), catalase (CAT), glutathionperoxidase 4 (GPX-4), malondialdehyde (MDA), interleukine-15 (IL-15), interferon-gamma (IFN-γ) en interleukine-6 (IL-6) te detecteren. Een Western blot werd uitgevoerd om de niveaus van MHC I, IL-15, FOXO3a, SOD, CAT, GPX-4, IFN-γ, IL-6 en IL-15 te beoordelen. ChIP-PCR werd uitgevoerd om de verrijking van AMG bij de promotors van SOD, CAT en GPX-4 in FOXO3a te beoordelen. Ondertussen werden ROS, apoptose en de eiwit- en genniveaus van FOXO3a, SOD, CAT en GPX-4 in HPEMs met een lage FOXO3a-expressie onderzocht. AMG heeft geen potentiële lever- of niertoxiciteit en kan de expressie van MHC I- en IL-15-eiwitten in de huid, evenals het serum-IL-15, verminderen. AMG kan de expressie van het FOXO3a-eiwit en -gen in de huid verhogen, evenals de niveaus van SOD, CAT en GPX-4, terwijl de ROS- en MDA-niveaus worden verlaagd. AMG kan MHC I, IFN-γ, IL-6, IL-15, MDA, apoptose en de productie van ROS in HPEMs remmen en de gehaltes van SOD, CAT en GPX-4 verhogen. Belangrijk is dat AMG de expressie van de FOXO3a-, SOD-, CAT- en GPX-4-genen en -eiwitten kan opreguleren en FOXO3a kan verrijken bij de promotors van SOD, CAT en GPX-4. Deze gegevens suggereren dat AMG de expressie van FOXO3a kan bevorderen en oxidatieve stress en inflammatoire responsen kan remmen, waardoor AA bij C3H/HeJ-muizen wordt verbeterd.
Inleiding
Als een auto-immuunziekte die wordt gekenmerkt door plotseling, niet-littekenvormig haarverlies, heeft alopecia areata (AA) een wereldwijde prevalentie van ongeveer 2–3%, en zijn er meer dan 30 miljoen patiënten in China1. Epidemiologische gegevens tonen aan dat de ziekte personen uit alle leeftijdsgroepen kan treffen, maar het vertoont een hogere prevalentie onder jongvolwassenen, waarbij ongeveer 60% van de patiënten de eerste symptomen ervaart vóór de leeftijd van 20 jaar, met een nagenoeg gelijke man-vrouwverhouding1,2. Wereldwijd is de jaarlijkse incidentie van AA ongeveer 0,2–0,3%, waarvan 40% een enkelvoudige AA is, 35% een meervoudige AA, 5% totale kaalheid en 2% universele alopecia3,4,5. Wat betreft complicaties hebben ongeveer 30% van de patiënten nageldepressies, longitudinale groeven en andere beschadigingen, en de comorbiditeitsgraad met auto-immuunziekten zoals schildklieraandoeningen en vitiligo overstijgt de niveaus die in de algemene bevolking worden waargenomen6,7. Vanuit een schadelijk perspectief beïnvloedt AA niet alleen het uiterlijk, maar is het ook vatbaar voor het veroorzaken van psychologische problemen zoals depressie en angst, waarbij ongeveer 70% van de patiënten met een recent begin grote stressvolle gebeurtenissen ervaart binnen 3 maanden vóór het ontstaan8,9. Bij langdurige afwezigheid van behandeling kunnen patiënten progressie vertonen naar totale kaalheid of universele alopecia, wat hun sociale functioneren en kwaliteit van leven ernstig beïnvloedt10.
Momenteel maakt de westerse geneeskunde voor de behandeling van AA voornamelijk gebruik van een combinatie van lokale geneesmiddelen, orale medicatie, fysiotherapie en haartransplantatie11,12. De lokale behandeling bestaat hoofdzakelijk uit minoxidil-oplossing en corticosteroïden (zoals fluticasonz propionaatcrème), die de haarfollikels stimuleren en lokale immuunresponsen remmen om haargroei te bevorderen, maar langdurig gebruik kan leiden tot bijwerkingen zoals huidatrofie13,14. Voor patiënten met een progressief ziekteverloop kunnen orale immunosuppressiva (zoals prednison en ciclosporine) de systemische immuunrespons effectief reguleren, maar hiervoor is regelmatige monitoring van de lever- en nierfunctie vereist12,15. Binnen de fysiotherapie verbeteren smalbandige middengolf-ultraviolette straling en therapie met laag-energetische lasers de microcirculatie om haargroei te ondersteunen, maar er zijn meerdere behandelingen nodig en het effect varieert per persoon16,17. Bij hardnekkige gevallen kan via een haartransplantatie-operatie gezonde haarfollikels naar het kale gebied worden verplaatst, maar er is een risico op mislukking van de transplantatie en medicamenteuze ondersteuning is vereist18. De voordelen van de westerse geneeskundige behandeling liggen in het snelle begin van de werking en de hoge mate van standaardisatie, vooral bij vroege gelokaliseerde AA19. De nadelen zijn echter dat hormoonmedicatie gevoelig is voor rebound-effecten, immunosuppressiva aanzienlijke bijwerkingen hebben en dat de effectiviteit beperkt is bij patiënten met totale kaalheid/universale alopecia20,21. Daarnaast is de behandelcyclus lang (meestal 3–6 maanden) en zijn de kosten hoog (zoals de jaarlijkse kosten van JAK-remmers en biologische middelen, die 100.000 yuan overschrijden), wat de brede toepassing beperkt19,22. Om de bovengenoemde redenen is het voor de auteurs dringend noodzakelijk om nieuwe doelgerichte geneesmiddelen te onderzoeken.
Oxidatieve stress draagt substantieel bij aan het pathogene mechanisme van AA. Tijdens het proces van pigmentsynthese in melanocyten wordt een grote hoeveelheid waterstofperoxide (H2O2) geproduceerd23,24. Onder normale omstandigheden kan dit worden afgebroken door antioxidante enzymen (zoals superoxide dismutase (SOD) en catalase (CAT))25. Bij personen met AA is de activiteit van antioxidante enzymen echter vaak lager, wat resulteert in de accumulatie van oxidatieve producten en leidt tot DNA-schade en celapoptose26,27. Deze toestand van oxidatieve stress zal de ontstekingsrespons verder activeren, waarbij pro-inflammatoire mediatoren (zoals TNF-α en IFN-γ) vrijkomen, wat een vicieuze cirkel van oxidatieve stress en ontsteking vormt28. De ontstekingsrespons valt de haarfollikels aan via T-lymfocyten, waardoor de haarfollikels in een rustfase treden en uitvallen29. Klinische studies hebben aangetoond dat patiënten met AA vaak andere auto-immuunziekten hebben (zoals schildklierziekten)30, wat suggereert dat systemische immuundysregulatie dient als een kritieke precipiterende factor. Daarnaast stimuleren oxidatieve stress en ontsteking gezamenlijk de apoptose van haarfollikelcellen, en de verstoring van apoptotische signalen zal het regeneratieve vermogen van de haarfollikel verder beschadigen, waardoor hergroei van het haar wordt voorkomen31. Daarom moet de behandeling van AA rekening houden met antioxidatieve en anti-inflammatoire werking en de regulatie van apoptotische pathways om deze vicieuze cirkel te doorbreken.
Amygdaline (AMG) is een natuurlijk voorkomende cyanogene glycosideverbinding, die voornamelijk in plantenzaden van de Rosaceae-familie voorkomt (zoals abrikoos-, amandel-, perzikpitten en loquat)32,33,34. Voorafgaande studies hebben aangetoond dat AMG psoriasis kan verbeteren door de barrièrefunctie van de huid te versterken35. Ondertussen maken de anti-apoptotische en anti-oxidatieve stresswerkingen van AMG het mogelijk om deze verbinding te gebruiken bij de behandeling van AA36,37. Eerder bewijs bevestigde evenzij dat AMG de ontstekingsreactie kan remmen om de AA-symptomen bij C3H/HeJ-muizen te verlichten38. Het moleculaire mechanisme waarmee AMG ontsteking remt en oxidatieve stress vermindert om AA te verlichten, is echter nog onvoldoende beschreven. Deze studie demonstreerde hoofdzakelijk de door forkhead box O3A (FOXO3a)-signalering gemedieerde oxidatieve stressgebeurtenissen door AMG-interventie bij de behandeling van het AA-model in C3H/HeJ-muizen en het letselmodel van primaire menselijke epidermale melanocyten (HPEMs) geïnduceerd door H2O2.
Protocol
Ethische goedkeuring en toestemming tot deelname
De experimentele protocollen met dieren werden goedgekeurd door de Ethische Commissie van Scientist Biotechnology Co., Ltd. (Ethicale Goedkeuringsnummer: SYST-2024-014), overeenkomstig ARRIVE 2.0 en de NIH-richtsnoeren voor de verzorging en het gebruik van laboratoriumdieren. En de Ethische Commissie van Sichuan Provincial People’s ziekenhuis verleende toestemming voor het ethisch gebruik van menselijke klinische monsters voor in vitro experimenten (ethische goedkeuringnummer: 2024103). Voor alle weefselgevers is geïnformeerde toestemming verkregen. Alle commerciële gegevens van de gebruikte reagentia en apparatuur zijn opgenomen in de Overzicht van materialen.
Opbouw van het AA-model in C3H/HeJ-muizen en toediening van AMG
Op basis van eerder gepubliceerde literatuur werd het AA-model in C3H/HeJ-muizen opgewekt en behandeld met AMG38,39. Kort gezegd, dertig vrouwelijke C3H/HeJ-muizen (6–8 weken oud) ondergingen een acclimatisatieperiode van één week voordien zij willekeurig werden toegewezen aan vijf verschillende groepen: Controle, AA, AMG-L, AMG-M en AMG-H. Behalve voor de controlegroep werd het AA-model in de overige vier groepen gevestigd door 0,05 g imiquimodcrème aan te brengen op de dorsale huid van de muizen. Deze toediening vond driemaal per week plaats, wat resulteerde in een totaal van negen doses. Het behandelde huidgebied was 1,5 cm × 1,5 cm. Muisjes in zowel de controlegroep als de AA-cohorte ontvingen dagelijks 0,02 mL/g fysiologische zoutoplossing per gavage. Terwijl de muisjes in de AMG-groepen dagelijks intragastrale injecties kregen van 60, 90 en 120 mg/kg. De toedieningsperiode bedraagt 21 dagen. Voor de algemene observatie en beoordeling van het AA-model, een goed afgebakende circulaire alopecia-patch ≥ 1 cm in doorsnede, zonder littekens of ernstige ontsteking, en met gebroken haarstengels, is vereist. Als muizen diffuus volledig lichaamsonthaarde huid vertonen, ernstige huidulceratie of spontane snelle haarhergroei, worden zij uitgesloten.
HPEM's
Volgens de vorige methode40, gezonde huidweefsels van patiënten die in het ziekenhuis een circumcisie hadden ondergaan, werden geselecteerd en ondergedompeld in 75% alcohol gedurende 5 min. De huidweefsels werden vervolgens herhaaldelijk gewassen met PBS, aangevuld met ampicilline (100 U/mL) en streptomycinesulfaat (100 mg/mL), en geïncubeerd in dispase II-oplossing bij 4°C om te laten vertalen. De gescheiden en geïsoleerde epidermale lagen werden fijngesneden en gefiltreerd via een steriel membraan om de cel-suspensie te verkrijgen. Na centrifugatie werden de sedimentaire cellen uit de onderste laag geoogst en daarna opnieuw gesuspendeerd in melanocytenmedium 254 zonder serum, en opnieuw gezaaid in een dichtheid van ongeveer 5 × 10⁵ in kweekflessen en gekweekt in een CO2 incubator. Na drie passages werden zuivere melanocyten gebruikt voor vervolgonderzoeken.
Opzetten van H2O2-geïnduceerd menselijk melanocyt-oxiatieve stressletselmodel en AMG-interventie
Menselijke melanocyten met een fusiegraad van 60% tot 80% werden onderverdeeld in een controlegroep en groepen met verschillende concentraties van H2O2 (200, 400, 600, 800 en 1000 µM). Na een 24-uurs incubatie werd de celleviabiliteit gemeten beoordeeld met de CCK-8-methode. Vervolgens de optimale concentratie van H2O2 werd gebruikt om het melanocyt-oxiativestresmodel op te zetten, en verschillende concentraties AMG (0,1, 0,25, 0,5, 1, 2,5, 5 en 10 mg/mL) werden toegevoegd voor een 24-uurs cultuur. Vervolgens werd de celviabiliteit geselecteerd om de concentratie AMG te beoordelen en screenen.
HE-onderzoek
Muislever- en nierweefsels werden 24 uur gefixeerd in 4% paraformaldehyde en ingebed in paraffine, gevolgd door een dehydratieproces in de volgende stappen: 70% ethanol gedurende 4 uur, 80% ethanol gedurende 2 uur, 90% ethanol gedurende 2 uur, 95% ethanol gedurende 2 uur, anhydrous ethanol tweemaal, elkmaal 1 uur; xyleen tweemaal, elkmaal 30 minuten38,39,41. Vervolgens, 4-µm paraffine sneden ondergingen H&E-vlekken, werden gedehydrateerd, geklaard en gemonteerd met neutrale hars. Een 3D HISTECH-scanner werd gebruikt om de weefselsecties te digitaliseren, en afbeeldingen bij 20× en 40× vergrotingen werden vastgelegd.
Enzymgekoppelde immunosorbent-assay (ELISA) en biochemische detectie
Huidweefsels werden gehomogeniseerd in een buffersoplossing in een verhouding van 1:9 (w/v) en vervolgens gecentrifugeerd bij 1006–1789 × g gedurende 10 min. Na eiwitkwantificering in serum, huidweefselextracten en cel-supernatanten met behulp van BCA, de niveaus van MDA, IL-6, IL-15 en IFN-γ werden bepaald met de overeenkomstige ELISA-kits. De enzymactiviteiten van SOD, CAT en GPX-4 werden gemeten volgens de instructies van de respectieve biochemische kits.
Stroomcytometrie voor de detectie van reactieve zuurstofsoorten (ROS)
Serumvrij kweekmedium werd gebruikt om 10 te verdunnenµM DCFH-DA in een verhouding van 1:1000. Vervolgens werden muis huidweefsels of humane melanocyten voorbereid tot cel-suspensies van 1–20×106 cellen/mL met behulp van 10µM DCFH-DA. De cellen werden geïncubeerd bij 37°C gedurende 20 min. Tijdens deze periode werden de cellen elke 3–5 min. Na drie wasbeurten met serumvrij medium werden de intracellulaire ROS-niveaus gekwantificeerd via flowcytometrie, waarbij de excitatie- en emissiegolflengten respectievelijk op 488 nm en 525 nm werden ingesteld42,43.
Immunofluorescentiemeting
FOXO3a (1:1000) primaire antilichaam werd geïncubeerd met 4-µm huidweefselsecties of gefixeerde HPEM's gedurende de nacht bij 4°C. Vervolgens werden de monsters behandeld met secundaire antilichamen gelabeld met Alexa Fluor-fluoroforen en tegengekleurd met DAPI-oplossing. Tot slot werden de secties onderzocht en vastgelegd middels fluorescentiemicroscopie. Voor fluorescentiebeeldvorming met ROS werd een 4-µEen bevroren snede van huidweefsel of HPEM-preparaten werd op kamertemperatuur opgewarmd en gedroogd. Er werd met een histochemische pen een cirkel rond het weefsel getekend. De preparaten werden 5 minuten behandeld met een autofluorescentie-onderdrukker en daarna 10 minuten afgespoeld onder stromend water. Vervolgens werd ROS-kleuringoplossing toegevoegd en 37 °C in het donker geïncubeerd.°C gedurende 30 min. De sneden ondergingen drie wasbeurten van 5 minuten in PBS met behulp van een ontkleuringsschudder. Vervolgens werd DAPI-kleuringoplossing toegevoegd en geïncubeerd gedurende 10 minuten onder donkere omstandigheden bij kamertemperatuur. De preparaten werden afgesloten met een anti-fluorescentie-verdovend medium. Vervolgens werden de monsters bekeken en werden afbeeldingen verzameld met een fluorescentiemicroscoop. De excitatie/emissieprofielen zijn 330–380/420 nm voor DAPI en 510–560/590 nm voor Cy3.
Western blot
Voor muisweefsel of humane melanocyten, 50 mg van het huidweefsel of 2 × 10⁵ cellen en 1 mL RIPA-lysebuffer, verrijkt met proteaseremmers, werden in een 1,5-mL microcentrifugebuis gepipetteerd. Na 30 minuten op ijs werd 5 minuten gecentrifugeerd bij 12.000 g om het supernatant te verzamelen. Na bepaling van de eiwitconcentratie met de BCA-methode werden de eiwitoplossing en 5× SDS-laadbuffer werd in een volumeverhouding van 4:1 gemengd en vervolgens 5 minuten gekookt in een metalen bad bij 95 °C °C gedurende 5 min. Na elektroforese van het monster op 10% SDS-PAGE bij 80 V of 120 V, werden de eiwitten electroforetisch overgebracht naar een 0,22-µm PVDF-membraan bij een constante stroom van 200 mA gedurende 1 uur44,45De membranen werden vervolgens 1 uur geblokkeerd bij kamertemperatuur op een schudplatform met 5% mager melkpoeder (bereid in TBST-buffer). Vervolgens werden de membranen blootgesteld aan primaire antilichamen specifiek voor major histocompatibiliteitscomplex klasse I (MHC I) (1:1000), IFN-γ (1:1000), IL-6 (1:1000), IL-15 (1:1000), β-Actine (1:1000), SOD (1:1000), CAT (1:1000), glutathionperoxidase 4 (GPX-4) (1:1000) en FOXO3a (1:1000) bij 4 °C. en de membranen werden 1 uur bij kamertemperatuur geïncubeerd met het secundaire antilichaam (1:10000). ECL-chemiluminescentie-reagens werd gebruikt om beelden te ontwikkelen en vast te leggen met een ChemiScope 6100.
Kwantitatieve reverse transcriptie-polymerasekettingreactie (qRT-PCR)
Allereerst werd de monster-RNA uit muisweefsel van de huid of humane melanocyten verkregen overeenkomstig de instructies van de producent’s instructies van de totale RNA-extractiekit. Volgens de bedieningsinstructies van de reverse transcriptiekit werden de PCR-instrumentparameters ingesteld op 25°C gedurende 10 min, 42°C gedurende 15 minuten, en 85°C gedurende 5 minuten om cDNA-samples te verkrijgen. Evenzo waren de parameters voor het instellen van het PCR-apparaat als volgt om voldoende DNA-kopieën te verkrijgen: Voorverdenaturatie: 95°C gedurende 5 min, 1 cyclus; Denaturatie: 95°C gedurende 10 s, 40 cycli; Aanhechting en verlenging: 60°C gedurende 30 s, 40 cycli. De genormaliseerde expressie van het gen van belang wordt berekend met de volgende formule: 2‑ΔΔCq (ΔΔCq = Cqdoelwit‑Cqβ‑Actine)46,47. De informatie over de genprimersequenties voor qRT-PCR is weergegeven in Tabel 1.
ChIP-PCR-analyse
ChIP-PCR-analyse werd uitgevoerd volgens het eerdere protocol48. Eerst werden de cellen 10 minuten lang met 1% formaldehyde gecrosslinkt en werd een glycine-oplossing toegevoegd om de crosslinkreactie te stoppen. Na wassen met vooraf gekoelde PBS, bevattende PMSF, werden de cellen gelysed met SDS-lysebuffer, bevattende PMSF. Vervolgens werd het chromatine-DNA met een ultrasone celverbreker in fragmenten verbroken, die voornamelijk tussen de 200 en 1.000 bp lagen, en werd de fragmentgrootte geverifieerd door middel van agarosegelfelectroforese. De verbroken chromatinesamples werden opnieuw gesuspendeerd in ChIP-verdunningsbuffer, bevattende PMSF, en 20µL van het monster werd gebruikt als ingangscontrole. De overige monsters werden voorbehandeld met Proteïne A+G Agarose/Zalm Sperma DNA. Vervolgens, 0,5µg primaire antilichaam werd toegevoegd, gevolgd door een incubatie gedurende de nacht bij 4°C met langzame schudding. De negatieve controlegroep werd behandeld met een gelijke hoeveelheid konijn-IgG. De volgende dag werden Protein A+G agarose-korrels toegevoegd om de antigeen-antilichaamcomplexen te binden, en de complexen werden achtereenvolgens gewassen met lage-zout immuuncomplex wasbuffer, hoge-zout immuuncomplex wasbuffer, LiCl immuuncomplex wasbuffer en TE-buffer. De geïmmunoprecipiteerde complexen werden geëludeerd met elutiebuffer, en zowel de elutieproducten als de monsters in de inputcontrolegroep ondergingen een warmtebehandeling van 65°C gedurende 4 uur om de crosslinks te verbreken. Na eiwitvertering met behulp van proteïnase K werd het DNA geïsoleerd via fenol-chloformextractie gevolgd door ethanolprecipitatie. Het gezuiverde DNA werd opgelost in TE-buffer en gebruikt voor vervolgende qRT-PCR-analyse. En de gensequentie-informatie voor ChIP-PCR is weergegeven in Tabel 2.
De genomische kandidaatsites voor ChIP-PCR werden geselecteerd via in silico-voorspelling met gebruik van de JASPAR-database (https://jaspar.elixir.no/). Specifiek haalden onderzoekers de promotorsequenties op, die 2000 bp stroomopwaarts van de TSS van het CAT, SOD, en GPX4 genen. Deze sequenties werden gescreend op FOXO3a-bindingsmotieven met behulp van de overeenkomstige position weight matrix. Om gevoeligheid en specificiteit in balans te houden, stelden de auteurs een relatieve profielscore-drempelwaarde in van >80%. Van alle voorspelde motieven die aan dit criterium voldoen, selecteerden de auteurs de twee putatieve sites met de hoogste score voor elk gen als kandidaatregio's voor ChIP-PCR-validatie. Bijvoorbeeld, in de CAT gen lagen de geselecteerde plaatsen op -733 bp en -1259 bp ten opzichte van de TSS. Het anti-FOXO3a-antilichaam dat in dit onderzoek werd gebruikt, is een commercieel verkrijgbaar ChIP-gegradeerd antilichaam. Om specificiteit te waarborgen, pasten de auteurs voor elke ChIP-PCR-assay twee onafhankelijke negatieve controles toe: isotype IgG en een negatief genoomlocus. De isotype IgG-controle werd uitgevoerd als parallelle immunoprecipitaties met behulp van niet-immuun IgG uit dezelfde soort. Voor het negatieve genoomlocus ontwierpen de auteurs een specifiek primerpaar dat een niet-bindingsgebied richt, waarin geen voorspeld FOXO3a-consensusmotief aanwezig is. Deze controlegroep stelde de auteurs in staat verrijking uit te sluiten als gevolg van willekeurige chromatinefragmentatie of niet-specifieke PCR-amplificatie. De verrijking in fold werd berekend aan de hand van een normalisatiestrategie in drie stappen.
Stap 1: Genormaliseerde invoer ΔCt, ΔCt [genormaliseerd IP] = Ct[IP]-(Ct[Input]-log₂(DF) (1)
ΔCt [genormaliseerd IgG] = Ct[IgG] - (Ct[Input] - log₂(DF). (2)
DF = Invoerverdunningsfactor; in het experiment was DF = 10, aangezien zij 10% invoermateriaal gebruikten.
Stap 2: ΔΔCt tussen IP en IgG:
ΔΔCt [IP/IgG] =ΔCt [genormaliseerde IP]ΔCt [genormaliseerd IgG] (3)
Stap 3: Vouwverrijking = 2(-ΔΔCt [IP/IgG]. (4)
Statistische analyse
De gegevens worden uitgedrukt als gemiddelde ± standaarddeviatie gebaseerd op een minimum van drie onafhankelijke experimenten. Statistische analyses werden uitgevoerd met behulp van GraphPad Prism-software (versie 6.0). Vergelijking van gegevens tussen meerdere groepen met een normale verdeling en homogeniteit van variantie werd beoordeeld met een eenwegvariantieanalyse (ANOVA), gevolgd door Tukey’s na de test. Statistische significantie werd vastgesteld op p < 0.05.
Resultaten
AMG vertoont geen hepatorenale toxiciteit in normale C3H/HeJ-muizen
Om vanuit een experimenteel perspectief de potentiële lever- en niertoxiciteit van AMG duidelijk vast te stellen, hebben onderzoekers de drie eerder bestudeerde doses (60, 90 en 120 mg/kg) via sondevoeding toegediend aan normale C3H/HeJ-muizen 38. Zoals getoond in Figuur 1, was na intragastrische toediening van AMG in drie doses gedurende 21 dagen de architectuur van de hepatische lobuli duidelijk, waarbij de hepatocyten op een ordelijke wijze waren gerangschikt. Het corticale en medullaire weefsel van de nier was normaal, en er werden geen beschadigingen of laesies waargenomen in de glomeruli of de niertubuli. Tijdens de toedieningsperiode van AMG vertoonden geen van de muizen abnormale gedragskenmerken. Inderdaad werden in dit artikel geen biochemische toxiciteits- of lichaamsgewichtsgegevens getest, wat de rationaliteit van de conclusie dat AMG geen lever- en niertoxiciteit heeft, kan beïnvloeden. Echter, op basis van de histopathologische onderzoeksresultaten van de lever en nier suggereren deze gegevens gedeeltelijk dat AMG-behandeling voor AA bij de door de auteurs vastgestelde doses redelijk is.
AMG remt het optreden en de ontwikkeling van AA, evenals de generatie van ROS
Ten eerste hebben zij de MHC I- en IL-15-indicatoren gemeten die intrinsiek verbonden met het begin en de progressie van AA. Zoals aangetoond in Figuur 2A–Conder de pathologische omstandigheden van de AA-simulatie nam de hoeveelheid MHC I- en IL-15-eiwitten in de huidweefsels van C3H/HeJ-muizen significant toe (p < 0,001). Daarentegen zorgden de behandelingen met AMG-M en AMG-H voor een significante downregulatie van de expressieniveaus van deze twee eiwitten (p < 0,01 of p < 0.001). Hetzelfde gold voor de drie doses van de AMG-behandeling, die het IL-15-gehalte in het serum significant onderdrukten (p < 0.001, Figuur 2D). Bovendien wezen de resultaten van de immunofluorescentie op een grote hoeveelheid ROS in de huid van de muizen in de AA-groep, terwijl de AMG-interventie de expressie van ROS significant verminderde in vergelijking met de AA-groep (p < 0.001, Figuur 2E en F). In overeenstemming hiermee lieten flowcytometrie-resultaten zien dat de ROS-niveaus in het huidweefsel van de AA-groep significant verhoogd waren in vergelijking met de controlegroep. Echter, in vergelijking met de AA-groep, keerde de AMG-interventie de toename van ROS om (p < 0.001, Figuur 2G en H).
AMG stimuleerde de eiwit- en genexpressie van FOXO3a
Om het effect van AMG op FOXO3a te onderzoeken, hebben de auteurs de expressieniveaus zowel op eiwit- als genetisch niveau getest. De resultaten van de immunofluorescentie toonden aan dat de AA-groep een aanzienlijke afname van de FOXO3a-proteinexpressie vertoonde, terwijl AMG het FOXO3a-proteineniveau in het huidweefsel van C3H/HeJ-muizen stimuleerde (p < 0.001, Figuur 3A en B). Verdere qRT-PCR-gegevens wijzen erop dat AMG de genexpressie van FOXO3a significant verhoogde (p < 0.001; Figuur 3C). Op dezelfde wijze wees het Western blot-experiment erop dat AMG aanzienlijk verhoogd de eiwitexpressie van FOXO3a (p < 0,05 of p < 0.001, Figuur 3D en E).
AMG remde de oxidatieve stressgebeurtenissen in het huidweefsel van AA-muizen
De pathologische progressie van AA gestimuleerd door oxidatieve stress leidt tot verslechtering. De biochemische testresultaten in Figuur 4 laten zien dat, vergeleken met de controlegroep, de antioxidant-indicatoren SOD, CAT en GPX-4 in het huidweefsel van muizen in de AA-groep significant geremd waren (p < 0,001, Figuur 4A en B), terwijl de pro-oxidatieve indicator MDA aanzienlijk toenam (p < 0,001, Figuur 4C). Zoals verwacht stelden onderzoekers vast dat na behandeling met AMG de antioxidant-indicatoren significant toenamen, terwijl de pro-oxidatieve indicatoren significant afnamen (p < 0,001; Figuur 4A–C). Vergelijkbaar suggereerden de Western blot-gegevens dat AMG-interventie de eiwitexpressieniveaus van de antioxidant-indicatoren SOD, CAT en GPX-4 significant verhoogde (p < 0,001; Figuren 4D en 4E).
AMG verminderde de apoptose en inflammatoire processen van HPEMs geïnduceerd door H2O2
De resultaten weergegeven in Figuur 5A geven aan dat toenemende concentraties H2O2 (200–1000 µM) de levensvatbaarheid van HPEMs progressief verslechterden (p < 0.001). Hiervan was 600 µM H2O2 de meest geschikte concentratie voor het verlagen van de cellevensvatbaarheid van HPEMs (p < 0.001). Bovendien stelden de auteurs vast dat onder de conditie waarbij HPEM-cellen werden gestimuleerd met 600 µM H2O2, 0,1–10 mg/mL AMG de cellevensvatbaarheid significant kon verhogen (p < 0.05 of p < 0.001, Figuur 5B). In overeenstemming met de resultaten van dierproeven stelden de auteurs ook vast dat AMG de H2O2-geïnduceerde apoptose in HPEMs significant remde, zoals aangegeven door flowcytometrie voor apoptosedetectie in Figuur 5C en D (p < 0.001). Voor de MHC I-indicator toonde Western blot-analyse verder aan dat AMG de eiwitexpressie in HPEMs die waren onderworpen aan H2O2-geïnduceerde schade merkbaar onderdrukte (p < 0.05 of p < 0.01; Figuren 5E en 5F). Voor de detectie van inflammatoire factoren gaven ELISA-resultaten aan dat AMG de abundantie van pro-inflammatoire cytokinen, waaronder IFN-γ, IL-6 en IL-15, in door H2O2 geïnduceerde HPEMs significant verminderde (p < 0.001; Figuur 5G). Verder werd de remming van deze drie pro-inflammatoire eiwitten door AMG verder gevalideerd via Western blot-analyse, zoals gepresenteerd in Figuur 5H en I (p < 0.01 of p < 0.001).
AMG verlaagde de ROS-niveaus van HPEMs geïnduceerd door H2O2
Vergeleken met HPEM-cellen die niet waren behandeld met H2O2 en AMG, stimuleerde de toediening van 600 µM H2O2 de productie van ROS significant, zoals blijkt uit de resultaten van immunofluorescentie (p < 0,001, Figuur 6A en B) en flowcytometrie-experimenten (p < 0,001, Figuur 6C en D), respectievelijk. Opvallend genoeg reduceerde AMG de hoeveelheid ROS significant (p < 0,001, Figuur 6).
AMG beperkte de oxidatieve stressreactie van HPEMs geïnduceerd door H2O22O2
Op dezelfde manier beoordeelden de auteurs hoe AMG de oxidatieve stress in HPEMs beïnvloedt die door H2O2 is geïnduceerd2O2Vergeleken met de controlegroep, H2O2 stimulatie leidde tot een afname van de functies van SOD, CAT en GPX-4 (p < 0.001, Figuur 7A en B), terwijl de MDA-spiegels significant toenamen (p < 0.001, Figuur 7C). Verrassend genoeg versterkte de AMG-interventie de activiteiten van SOD, CAT en GPX-4 aanzienlijk (p < 0.001, Figuur 7A en B), terwijl het niveau van MDA wordt verlaagd (p < 0.001, Figuur 7C). Verdere Western blot-resultaten bevestigden daarnaast dat de AMG-interventie de eiwitexpressie van SOD, CAT en GPX-4 significant verhoogde (p < 0,05 of p < 0.01, Figuur 7D en E).
AMG stimuleerde het FOXO3a-niveau en de door FOXO3a gereguleerde SOD, CAT en GPX-4 van HPEM's geïnduceerd door H2O2
Vergeleken met de controlegroep leidde H2O2-stimulatie tot een sterke afname van de FOXO3a-genexpressie (p < 0,001, Figuur 8A), terwijl interventie met AMG dit effect significant verminderde (p < 0,05, Figuur 8A). Verdere Western blot-analyse (p < 0,05, Figuur 8B en C) en immunofluorescentie-analyse (p < 0,05, Figuur 8D en E) bevestigden eveneens dat de toepassing van AMG de proteïne-expressie van FOXO3a aanzienlijk verhoogde. Het ChIP-PCR-experiment bevestigde dat AMG de expressieniveaus van SOD (p < 0,001), CAT (p < 0,01) en GPX-4 (p < 0,01) kan verhogen, zoals getoond in Figuur 8F–I, evenals het verrijkingsniveau van FOXO3a bij de promotors van SOD (p < 0,001), CAT (p < 0,001) en GPX-4 (p < 0,001) (Figuur 8J–L).
AMG onderdrukte de FOXO3a-gereguleerde oxidatieve stress en apoptotische fenomenen van HPEM's geïnduceerd door H2O2
In eerste instantie stelden onderzoekers een HPEM-lijn vast met een lage expressie van FOXO3a, die werd gekenmerkt door een aanzienlijke daling in de eiwitexpressie (p < 0,001, Figuur 9A en B) en genexpressieniveaus (p < 0,001, Figuur 9C) van FOXO3a. De resultaten van de flowcytometrie gaven verder aan dat AMG, in vergelijking met de H2O2-groep, de ROS-niveaus en celapoptose in HPEM's met een lage FOXO3a-expressie aanzienlijk verminderde (p < 0,001, Figuur 9D–G). Ondertussen verhoogde AMG significant de eiwit- en genexpressie van FOXO3a (p < 0,01, Figuur 9H–J) en de expressieniveaus van FOXO3a-gereguleerde SOD-, CAT- en GPX-4-eiwitten (p < 0,05, p < 0,01, of p < 0,001, Figuur 9H, K–O) en genen in HPEM's met een lage FOXO3a-expressie.
DATABESCHIKBAARHEID:
Alle ruwe gegevens zijn beschikbaar in de openbare datarepository via de volgende URL https://doi.org/10.5281/zenodo.22090466.
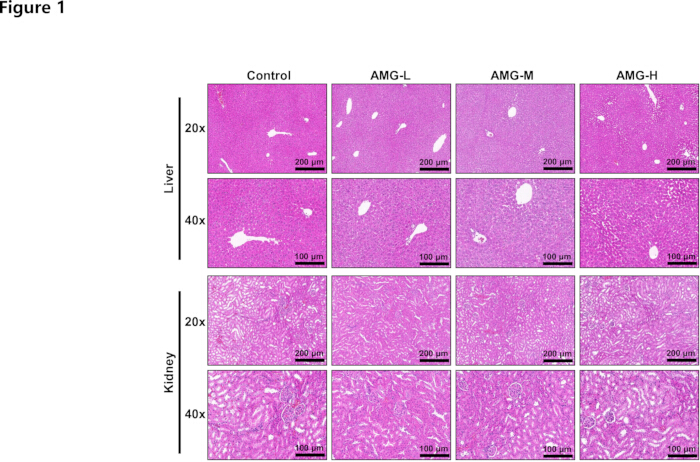
Figuur 1: HE-kleuring. HE-kleuring werd gebruikt om de dosisafhankelijke toxiciteit van AMG (60, 90 en 120 mg/kg) op de lever en nieren van normale C3H/HeJ-muizen te evalueren. Er werd geen specifieke pathologische schade aan de lever en nieren waargenomen bij een vergroting van 20× (200 µm) en 40× (100 µm). n = 6. Klik hier om een grotere versie van deze figuur te bekijken.
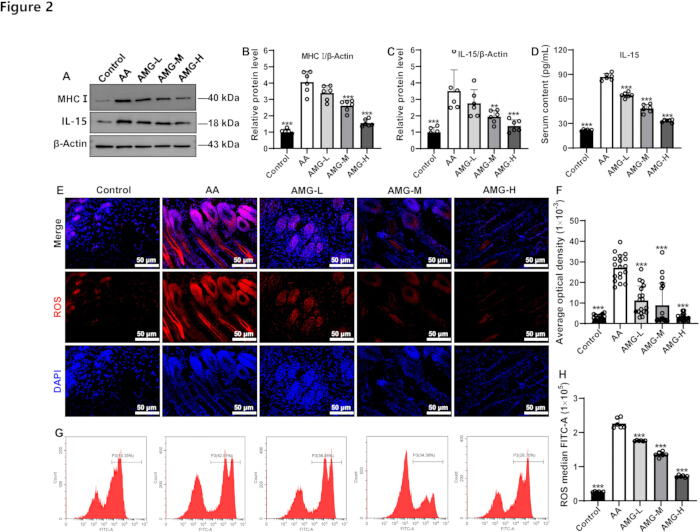
Figuur 2Effecten van AMG op MHC I, IL-15 en ROS in huidmonsters van AA-muizen. (A–C), AMG verminderde de eiwitexpressieniveaus van MHC I en IL-15, zoals geëvalueerd via Western blot. (D), AMG verlaagd IL-15-spiegels in het serum van de muizen. (E en F), AMG verminderde de ROS-niveaus in huidmonsters van muizen, zoals aangetoond door de IF-assay. (G en H), verlaagde AMG de ROS-niveaus in huidmonsters van muizen, bepaald via flowcytometrie. De experimentele resultaten worden gepresenteerd als gemiddelde ± Standaarddeviatie. **p < 0,01 en ***p < 0,001 t.o.v. de AA-groep; n = 6. Klik hier om een grotere versie van deze figuur te bekijken.
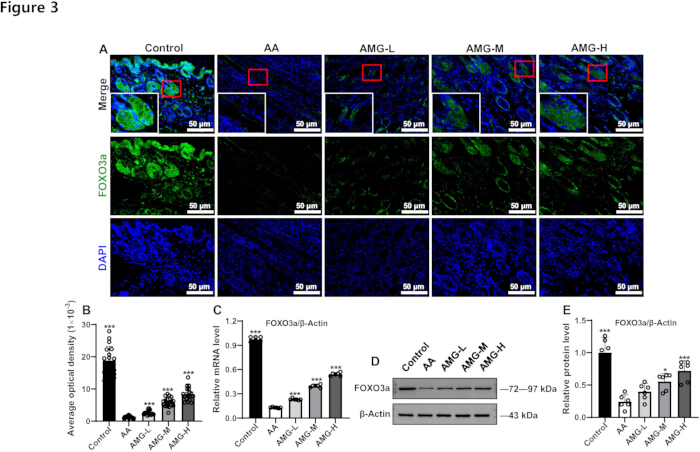
Figuur 3: Effecten van AMG op FOXO3a-proteïne- en genwaarden in huidmonsters van AA-muizen. (A) AMG verhoogde de FOXO3a-proteïnespiegels, geëvalueerd via IF-assay. (B) De kwantitatieve resultaten van IF. (C) AMG verhoogde de FOXO3a-genexpressie. (D) AMG verhoogde de FOXO3a-proteïne-expressie, gedetecteerd via Western blot. (E) De kwantitatieve resultaten van de Western blot. Experimentele resultaten worden weergegeven als gemiddelde ± SD. *p < 0,05 en ***p < 0,001 t.o.v. de AA-groep; n = 6. Klik hier om een grotere versie van deze figuur te bekijken.
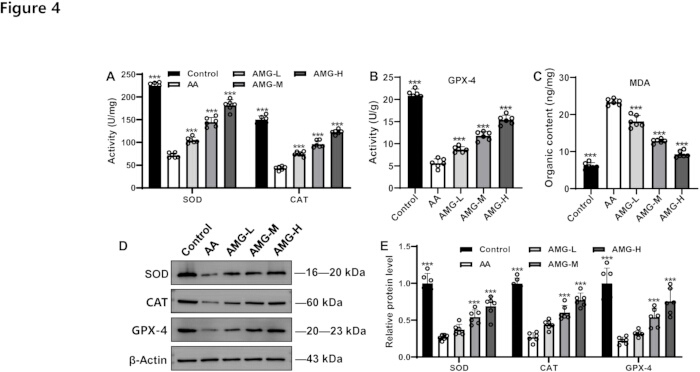
Figuur 4: Effecten van AMG op indicatoren van oxidatieve stress in huidmonsters van AA-muizen. (A) AMG stimuleerde de spiegels van SOD en CAT, zoals geëvalueerd met een biochemische testkit. In (B) en (C) verhoogde AMG de GPX-4-spiegels en onderdrukte het de MDA-spiegels. (D) representatieve eiwitbanden van SOD, CAT en GPX-4. (E) De kwantitatieve resultaten van de eiwitexpressie voor SOD, CAT en GPX-4. Experimentele resultaten worden gepresenteerd als gemiddelde ± SD. ***p < 0,001 vs. de AA-groep; n = 6. Klik hier om een grotere versie van deze figuur te bekijken.
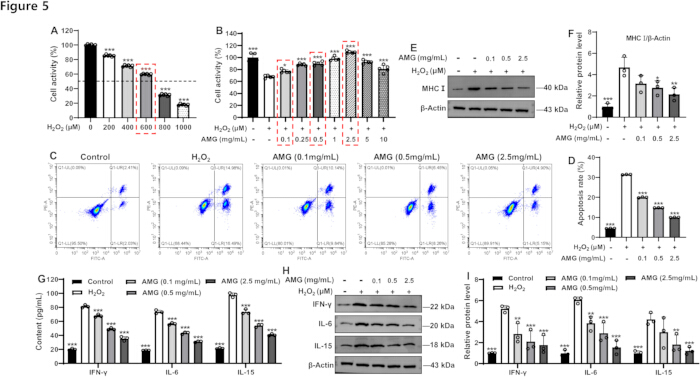
Figuur 5: Effecten van AMG op de apoptose- en ontstekingsindicatoren van HPEM's geïnduceerd door H2O2. (A) gevolgen van variërende concentraties H2O2 op de levensvatbaarheid van HPEM's (n = 6). (B) Effecten van variërende concentraties AMG op de overleving van HPEM's geïnduceerd door H2O2-stimuli (n = 6). (C) Flowcytometrische analyse werd gebruikt om AMG-gemedieerde apoptose in HPEM's geïnduceerd door H2O2-stimuli te beoordelen. (D) De statistische resultaten van celapoptose. (E) Western blot-band van MHC I. (F) Het kwantitatieve resultaat van de relatieve expressie van het eiwit MHC I. (G) effecten van AMG op IFN-γ, IL-6 en IL-15 in HPEM's geïnduceerd door H2O2-stimuli. (H) Western blot-banden van IFN-γ, IL-6 en IL-15. (I) Het kwantitatieve resultaat van het relatieve niveau van de eiwitten IFN-γ, IL-6 en IL-15. Experimentele resultaten worden gepresenteerd als gemiddelde ± SD. *p < 0.05, **p < 0.01 en ***p < 0.001 t.o.v. de H2O2-groep; n = 3. Klik hier om een grotere versie van deze figuur te bekijken.
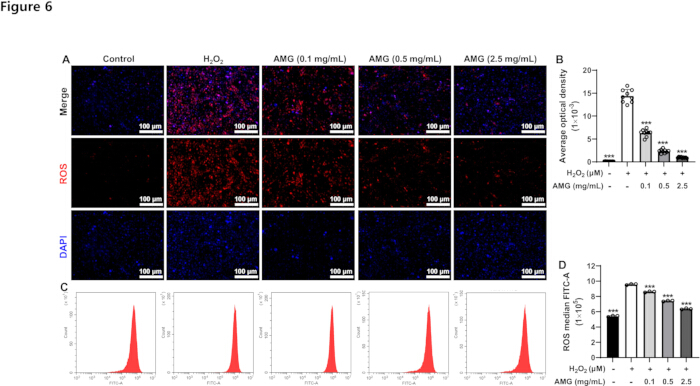
Figuur 6: Effecten van AMG op ROS in HPEMs geïnduceerd door H2O2. (A) De fluorescentie-afbeelding van ROS. (B) De kwantitatieve statistische fluorescentieresultaten van ROS. (C) De flowcytometrie-afbeelding van ROS. (D) De kwantitatieve statistische flowcytometrie-resultaten van ROS. Experimentele resultaten worden weergegeven als gemiddelde ± SD. ***p < 0.001 t.o.v. de H2O2-groep; n = 3. Klik hier om een grotere versie van deze figuur te bekijken.
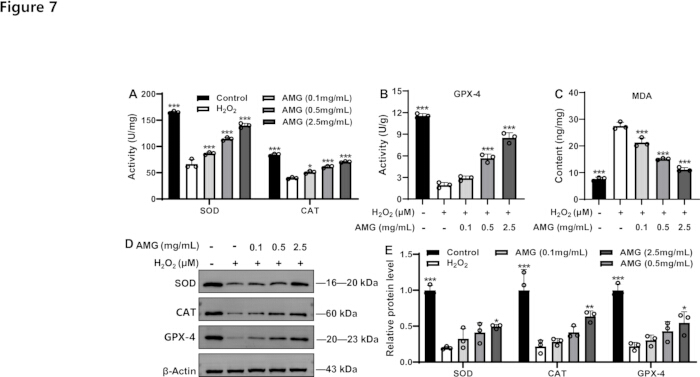
Figuur 7: Effecten van AMG op indicatoren van oxidatieve stress in HPEMs geïnduceerd door H2O2. De niveaus van SOD, (A) CAT, (B) GPX-4, en (C) MDA in HPEMs werden gemeten met biochemische kits of ELISA-kits. Western blot-banden van SOD, CAT en GPX-4 (D), en de kwantitatieve resultaten hiervan (E). Experimentele resultaten worden weergegeven als gemiddelde ± SD. *p < 0,05, **p < 0,01 en ***p < 0,001 ten opzichte van de H2O2-groep; n = 3. Klik hier om een grotere versie van deze figuur te bekijken.
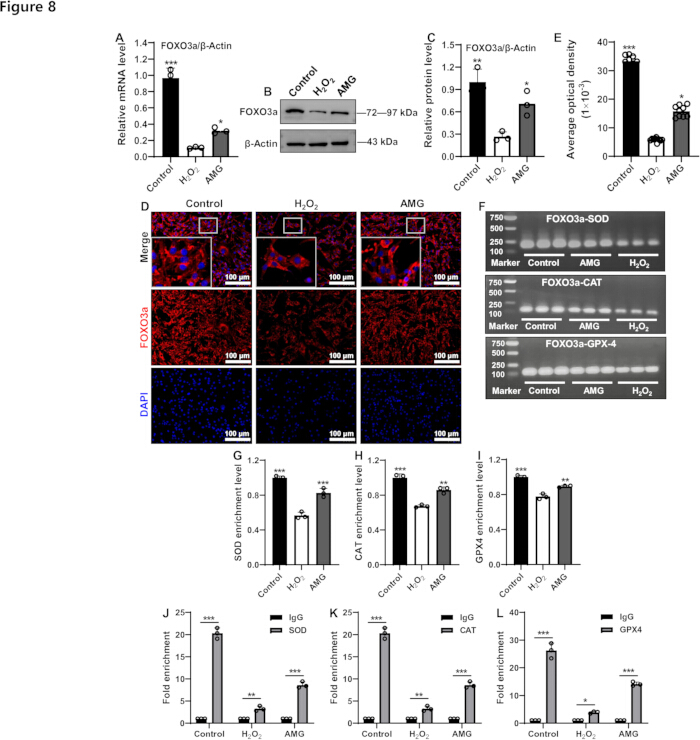
Figuur 8: Effecten van AMG op FOXO3a in HPEMs geïnduceerd door H2O2. (A) het expressieniveau van het FOXO3a-gen. Western blot-banden van FOXO3a (B) en de kwantitatieve resultaten daarvan (C). De fluorescentieafbeelding van FOXO3a (D) en de kwantitatieve statistische resultaten van de fluorescentie (E). (F) representatieve elektroforetische patronen van ChIP-PCR voor FOXO3a-SOD, FOXO3a-CAT en FOXO3a-GPX-4. Kwantitatieve analyse van de grijswaarden van de ChIP-PCR-banden voor SOD (G), CAT (H) en GPX-4 (I). De verrijkingsniveaus van FOXO3a bij de promotoren van SOD (J), CAT (K) en GPX-4 (L) werden gedetecteerd via ChIP-PCR. Experimentele resultaten worden gepresenteerd als gemiddelde ± SD. *p < 0,05, **p < 0,01 en ***p < 0,001 t.o.v. de H2O2-groep, of t.o.v. de aangegeven groepen; n = 3. Klik hier om een grotere versie van deze figuur te bekijken.
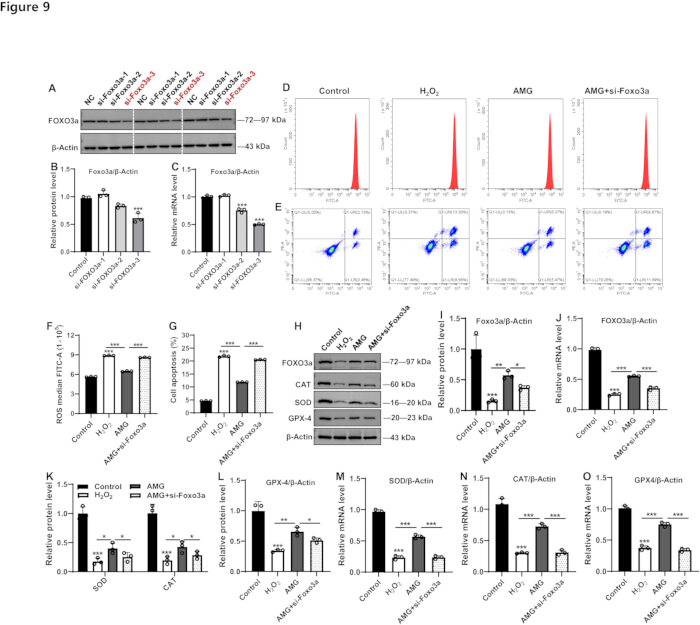
Figuur 9: Effecten van AMG op oxidatieve stress en apoptose in HPEM-cellen met een lage expressie van FOXO3a en H2O2-stimuli. (A) Western blot-banden van FOXO3a en het kwantitatieve resultaat (B). (C) kwantitatief resultaat van de FOXO3a-mRNA-expressie. (D) flowcytometrie-grafiek van ROS en celapoptose (E). En de bijbehorende statistische bevindingen (F en G). (H) western blot-banden van FOXO3a, SOD, CAT en GPX-4. (I) Het kwantitatieve resultaat van de FOXO3a-proteïne-expressie. (J) kwantitatief resultaat van de FOXO3a-mRNA-expressie. (K en L) kwantitatieve resultaten van de proteïne-expressie van SOD, CAT en GPX-4. Kwantitatieve resultaten van de genexpressie van SOD (M), CAT (N) en GPX-4 (O). Experimentele resultaten worden gepresenteerd als gemiddelde ± SD. *p < 0,05, **p < 0,01 en ***p < 0,001 t.o.v. de controlegroep, of t.o.v. de aangegeven groepen; n = 3. Klik hier om een grotere versie van deze figuur te bekijken.
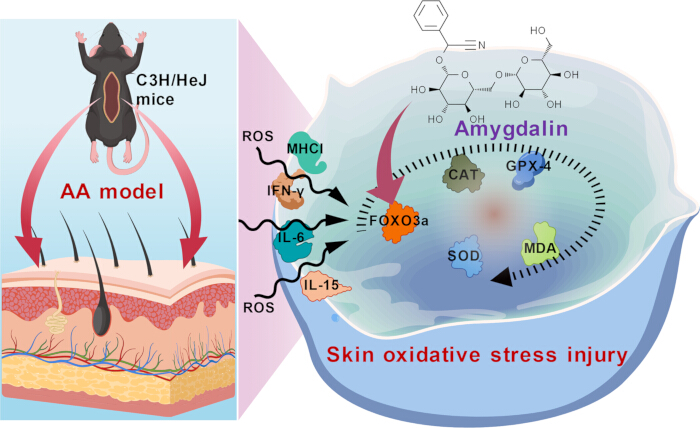
Figuur 10: Schematisch diagram. Dit diagram illustreert het mechanisme waarmee AMG de expressie van FOXO3a stimuleert, waardoor oxidatieve stress en ontsteking worden geremd en AA wordt verbeterd. Het is door de auteurs gemaakt met behulp van BioGDP.com, en er zijn geen auteursrechtelijke bezwaren. Klik hier om een grotere versie van deze figuur te bekijken.
| Genen | Soort | Sequenties (5' - 3') | Lengte (bp) |
| FOXO3a | Muis | Forward: GCAAGCCGTGTACTGTGGA | 116 |
| Reverse: CGGGAGCGCGATGTTATCC | |||
| FOXO3a | Mens | Forward: CGGACAAACGGCTCACTCT | 150 |
| Reverse: GGACCCGCATGAATCGACTAT | |||
| SOD | Mens | Forward: AAAGATGGTGTGGCCGATGT | 167 |
| Reverse: CAAGCCAAACGACTTCCAGC | |||
| CAT | Mens | Forward: CTATCCTGACACTCACCGCC | 129 |
| Reverse: CCACCCTGATTGTCCTGCAT | |||
| GPX-4 | Mens | Forward: GCAAGGGCATCCTGGGAAAT | 84 |
| Reverse: GTTCTTGTCGATGAGGAACTGTG | |||
| β-Actin | Mens | Forward: AATCTGGCACCACACCTTCTACAA | 172 |
| Reverse: GGATAGCACAGCCTGGATAGCAA | |||
| β-Actin | Muis | Forward: GTGCTATGTTGCTCTAGACTTCG | 174 |
| Reverse: ATGCCACAGGATTCCATACC |
Tabel 1: Informatie over gensequenties voor qRT-PCR. De primers gebruikt voor qRT-PCR.
| Genen | Soorten | Sequenties (5' - 3') | Lengte (bp) |
| SOD | Mens | Voorwaarts: TGCCAGAAGAGGGACAGAACAGG | 173 |
| Omgekeerd: ATCCGCCCACAGACACGAGAG | |||
| CAT | Mens | Forward: GGGAAGCAGATTTCTCCAGTG | 141 |
| Omgekeerd: CCTTTCCCTTTTTAGTTGTGGC | |||
| GPX-4 | Mens | Voorwaarts: TGGCACATTTTGGGGTTGGAAC | 103 |
| Omgekeerd: TGAACGCTCCTCCTCCTTAAACG |
Tabel 2: Informatie over genvolgordes voor ChIP-PCR. De primers gebruikt voor ChIP-PCR.
Discussie
AMG zelf heeft geen directe toxiciteit. Het wordt gehydrolyseerd door intestinale microbiële enzymen of maagzuur, waarbij zeer toxisch waterstofcyanide wordt gegenereerd en vrijgegeven49. Waterstofcyanide wordt vervolgens snel via het spijsverteringskanaal in de bloedbaan opgenomen en verspreidt zich door de weefsels van het lichaam, wat leidt tot hypoxie in de weefsels van het zenuwstelsel, het cardiovasculaire systeem en het ademhalingsstelsel50. Wat het mechanisme betreft, bindt waterstofcyanide zich aan de ijzerionen in cytochroomoxidase, waardoor de cellulaire ademhalingsketen wordt geblokkeerd, wat resulteert in weefselhypoxie en cellulaire metabole stoornissen, en acute vergiftiging uitlokt51. De toxische symptomen omvatten hoofdpijn, misselijkheid, braken en ademhalingsproblemen49,52. In ernstige gevallen kan dit leiden tot respiratoir falen en de dood49,52. Daarom is het waarborgen van het veilige doseringsbereik van AMG een voorwaarde voor het bestuderen van de farmacologische effecten ervan. In deze studie bevestigden de auteurs eerst via pathologisch onderzoek dat de gebruikte doses (60, 90 en 120 mg/kg) geen lever- of niertoxiciteit veroorzaakten bij normale C3H/HeJ-muizen, wat de basis vormt voor verder onderzoek naar de behandeling van alopecia areata met AMG.
IFN-γ fungeert als een kritische drijver van ontsteking tijdens de ontwikkeling van AA, waarbij het hoofdzakelijk wordt uitgescheiden door geactiveerde CD4+/CD8+ T-cellen53,54,55. Het verstoort het immunologische privilege van haarfollikels (zoals door het remmen van de lage expressie van MHC I), waardoor autoreactieve T-cellen de melanocyten van haarfollikels aanvallen, wat resulteert in vacuolisatie van haarstamcellen en abnormale keratinisatie van de haarbol56,57. Dierproeven hebben aangetoond dat muizen die het IFN-γ-gen missen resistentie vertonen tegen AA58. IL-6 en IL-15 kunnen Th1-type immuunresponsen versterken door de JAK/STAT-signaaltransductiecascade te activeren en de afgifte van IFN-γ te bevorderen 59. Bovendien kan IL-15 de proliferatie van NK-cellen en T-cellen stimuleren, waardoor de inflammatoire infiltratie rondom de haarfollikelstructuren wordt verergerd60. Normale haarbollen ontwijken immuunbewaking door een lage expressie van MHC I, terwijl MHC I bij AA-patiënten abnormaal is upgereguleerd, waardoor de melanocyten van haarfollikels het doelwit worden van T-celaanvallen61. In deze studie merkten de auteurs op dat behandeling met AMG de spiegels van MHC I en IL-15-eiwitten in de huid van C3H/HeJ-muizen significant downreguleerde. Voorgaande dierproeven bevestigden ook dat AMG de spiegels van IFN-γ en IL-6 in AA-muizen kan remmen38. Bij H2O2-opgewekte schade aan HPEMs werden MHC I, alsook pro-inflammatoire cytokinen waaronder IFN-γ, IL-6 en IL-15, aanzienlijk beperkt na behandeling met AMG. Deze gegevens suggereren dat het potentieel van AMG bij de behandeling van AA mogelijk gerelateerd is aan het behoud van het evenwicht tussen immuniteit en ontsteking.
De onbalans tussen het antioxidant-enzymsysteem (SOD, CAT en GPX-4) en de lipideperoxidatiemarkers MDA en ROS speelt een cruciale rol in de pathogenese van AA62. SOD vermindert oxidatieve stress door de omzetting van O2·⁻ naar H2O2 te katalyseren, terwijl CAT en GPX-4 H2O2 verder afbreken tot H2O, waardoor de accumulatie van ROS wordt voorkomen. Bewijzen suggereren dat overmatige ROS lipideperoxidatie kan triggeren, wat leidt tot verhoogde MDA-spiegels en directe beschadiging van haarzakjescellen63. Bij patiënten met AA neemt het vermogen om ROS in de haarzakjes te klaren af, en de accumulatie van MDA verergert de apoptotische dood van haarpapilcellen, waardoor de haarzakjes voortijdig in de rustfase terechtkomen63. Bovendien kan oxidatieve stress de afgifte van de pro-inflammatoire factor IFN-γ bevorderen, wat de immuunaanval en de degeneratie van de haarzakjes verder verergert64. In deze studie maakten onderzoekers duidelijk dat AMG-interventie de overexpressie van ROS in de huid van de AA-muizen en de door H2O2 geïnduceerde beschadiging van HPEM-cellen verminderde. Ondertussen toonden zowel in vivo als ex vivo experimentele onderzoeken aan dat AMG-behandeling de antioxidant-indicatoren (SOD, CAT en GPX-4) significant verhoogde, terwijl de pro-oxidatieve indicator MDA werd verzwakt. Deze bewijzen geven aan dat het handhaven van de balans van oxidatieve stress de bijdrage van AMG aan AA is. Gezien het feit dat een aangetaste GPX-4-activiteit zou leiden tot ongecontroleerde MDA-generatie, zou dit het ferroptoseproces kunnen triggeren. Deze moleculaire processen kunnen ook bijdragen aan de verergering van AA en dienen als een potentieel mechanisme voor AMG-behandeling. Al dit vereist in de toekomst verdere experimentele verificatie.
Als cruciale transcriptiefactor kan FOXO3a betrokken zijn bij de pathogenese van AA via zowel oxidatieve stress- als immuunregulatieroutes65Het kan bij oxidatieve stress transloceren naar de kern, waardoor sleutelantioxidante enzymen zoals SOD en CAT worden opgereguleerd om overtollige ROS te verwijderen en oxidatieve schade aan het hoofdhuidweefsel te verminderen. Door de lokale oxidatieve belasting te verminderen, kan FOXO3a het immuunprivilege van haarfollikels stabiliseren en de auto-immuunaanval die niet-littekenende haaruitval veroorzaakt, remmen. Met betrekking tot de regulatie van oxidatieve stress kan activering van FOXO3a de expressie van antioxidant-enzymen zoals SOD en CAT upreguleren en de accumulatie van ROS remmen.65Echter kan een aangetaste FOXO3a-functie leiden tot een verhoogde generatie van MDA, een belangrijk product van lipideperoxidatie, waardoor celapoptose wordt verergerd 66. Op het niveau van de immuunregulatie triggert FOXO3a auto-immuunaanvallen door de MHC I-beperkte antigenen te reguleren.67Deze studie rapporteerde dat AMG de eiwit- en genexpressieniveaus van FOXO3a drastisch verhoogde in het huidweefsel van C3H/HeJ-muizen en in H2O2-geïnduceerde HPEM-cellen. Bovendien verminderde AMG de ROS-niveaus en celapoptose, terwijl de FOXO3a-expressie en de niveaus van FOXO3a-gereguleerde SOD, CAT en GPX-4 werden verhoogd in HPEM-cellen met een lage FOXO3a-expressie. Collectief wijzen deze bevindingen erop dat het therapeutische effect van AMG op AA nauw verbonden is met de FOXO3a-gemedieerde regulerende balans tussen oxidatieve stress en cellulaire apoptose. Gezien de causale relatie van AMG-gemedieerde FOXO3a bij de verbetering van AA, is het in toekomstige studies noodzakelijk om FOXO3a-overexpressie of farmacologische inhibitie uit te voeren onder interventie van AMG. Daarnaast moet nog worden onderzocht of AMG-gemedieerde FOXO3a oxidatieve stress kan verminderen en inflammatoire responsen kan moduleren om haarfollikelstamcellen te beschermen tegen ROS-geïnduceerde schade en immuun-gemedieerde destructie. Een ander punt dat vermeldenswaardig is, is of AMG zijn antioxidanteffect uitoefent door de toxiciteit van H direct tegen te gaan.₂O₂ of door het reguleren van de intracellulaire signaaltransductie, blijft een onopgelost vraagstuk in dit onderzoek.
Concluderend heeft deze studie eerst bevestigd dat AMG bij de geteste doseringen geen potentiële toxiciteit vertoonde voor de lever en nieren. Bovendien werd op moleculair niveau aangetoond dat AMG de expressie van FOXO3a kan bevorderen, waardoor de expressies van SOD, CAT en GPX-4 transcriptioneel worden geactiveerd en ontstekingsreacties en apoptotische gebeurtenissen worden geremd bij de behandeling van AA (Figuur 10). Er zijn echter enkele beperkingen in deze studie die in vervolgonderzoek nog verder moeten worden onderzocht en opgehelderd. Ten eerste vormt de verduidelijking van de langetermijntoxiciteit en de farmacokinetische eigenschappen van AMG in AA-dieren de basis en vereiste voor diepgaand onderzoek naar de farmacologische effecten en moleculaire mechanismen ervan. Ten tweede vereisen de farmacologische effecten van AMG bij de behandeling van AA nog bevestiging via grootschalige studies in meerdere diermodellen en klinische trials. Wat betreft het moleculaire mechanisme is het nog noodzakelijk om rescue-experimenten uit te voeren om verder te bevestigen of FOXO3a inderdaad het farmacologische effect van AMG medieert. Of het gaat om de directe antioxidantactiviteit van AMG of om het antioxidatieve effect dat wordt uitgeoefend via AMG-gemedieerde FOXO3a, vereist verder onderzoek.
Openbaarmakingen
De auteurs hebben geen belangenconflicten te melden.
AUTEURS’ BIJDRAGE:
Xun He: Onderzoek, Methodologie, Schrijven – originele concept. Jingsong Liu, Jiawei Wang en Zhe Dai: gegevensbeheer. Yugang Gong, Wei Lu en Xiaowei Sha: software, visualisatie en validatie. Xun He: conceptvorming, schrijven – Beoordeling & Redactie, financiering en supervisie.
Dankbetuigingen
Dit werk werd ondersteund door het Sichuan Provincial Cadres Healthcare Committee (2024-221).
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| 5×All-In-One MasterMix (met AccuRT genomic DNA removal kit) | Applied Biological Materials Inc., Jiangsu, China | G492 | |
| β-Actine-antilichaam | Affinity Biosciences Co., Ltd., Wuhan, China | AF7018 | |
| Amygdaline | Chengdu Herbpurify Co., Ltd., Chengdu, China | K-001-181216 | |
| Katalase-antilichaam | Proteintech, Wuhan, China | 66765-1-Ig | |
| Catalase-kit | Elabscience, Wuhan, China | E-BC-K031-M | |
| C3H/HeJ-muizen | Chengdu Yaokang Biotechnology Co., Ltd., Chengdu, China | N000190 | |
| ChIP-assaykit | Beyotime Biotechnology, Shanghai, China | P2078 | |
| 254 kweekmedium | Gibco, Thermo Fisher Scientific, Amerika | M-254-500 | |
| DAPI-kleuringsreagens | Servicebio, Wuhan, China | G1012 | |
| Dispase II | Shanghai Yuanye Bio-Technology Co., Ltd., Shanghai, China | S25046 | |
| EvaGreen Express 2×qPCR MasterMix-zonder kleurstof | Applied Biological Materials Inc., Jiangsu, China | MasterMix-ES | |
| Fast Black HB | Sangon Biotech Co., Ltd., Shanghai, China | A602008-0025 | |
| Foetaal runderserum | Alles Groen | 13011-8611 | |
| Fluorescentiemicroscoop | SOPTOP | CX40 | |
| FOXO3a-antilichaam | Proteintech, Wuhan, China | 10849-1-AP | |
| Cryostaat | Thermo | Cryotome E | |
| Glutathionperoxidase 4-antilichaam | Proteintech, Wuhan, China | 67763-1-Ig | |
| Glutathione peroxidase 4-kit | Elabscience, Wuhan, China | E-BC-K883-M | |
| Image-pro plus 6.0 | Media Cybernetics, Inc., Rockville, MD, USA | —— | |
| Imiquimodcrème | Sichuan Mingxin Pharmaceutical Co. Ltd., Chengdu, China | H20030129 | |
| Interferon-gamma-antilichaam | Proteintech, Wuhan, China | 15365-1-AP | |
| Interferon-gamma kit | Elabscience, Wuhan, China | E-EL-H0108 en E-EL-M0048 | |
| Interleukine 6-antilichaam | Proteintech, Wuhan, China | 21865-1-AP | |
| Interleukine 6-kit | Elabscience, Wuhan, China | E-EL-H6156 en E-EL-M0044 | |
| Interleukine 15-antilichaam | Affinity Biosciences Ltd., Wuhan, China | DF2521 | |
| Interleukine 15-kit | Elabscience, Wuhan, China | E-EL-H0222 en E-EL-M0728 | |
| Malondialdehyde-kit | Elabscience, Wuhan, China | E-EL-0060 | |
| MHC-antilichaam | Affinity Biosciences Ltd., Wuhan, China | DF8558 | |
| Optische microscoop | ZEISS | Primo Star | |
| Paraffinesnijapparaat | Thermo Scientific | HM325 | |
| Pathologische scansoftware | 3DHISTECH (Hongarije) | Diaviewer 2.5.0 | |
| Penicilline-synthroid-oplossing | Biosharp, Peking, China | BL505A | |
| Konijn-IgG | Beyotime Biotechnology, Shanghai, China | A7016 | |
| ROS-assaykit | Beyotime Biotechnology, Shanghai, China | S0033M | |
| Superoxide dismutase 1 antilichaam | Proteintech, Wuhan, China | 10269-1-AP | |
| Weefselinbedingsysteem | Wuhan Junjie Electronics Co., Ltd., Wuhan China | JB-P5 | |
| Weefselhydro-extractor | Thermo Scientific | STP420 ES | |
| Kit voor isolatie van totaal RNA | Foregene, Chengdu, China | RE-03014 | |
| Total superoxide dismutase kit | Elabscience, Wuhan, China | E-BC-K020-M | |
| Witte vaseline | Shanghai Aladdin Biochemical Technology Co., Ltd., Shanghai, China | P434227 |
Referenties
- Li XQ, et al. Burden of alopecia areata in China, 1990-2021: Global Burden of Disease Study 2021. Chin Med J (Engl). 2025;138:318-324.
- Rodríguez-Tamez G, Maskan-Bermudez N, Tosti A. Alopecia areata incognita: Current evidence. Dermatol Ther (Heidelb). 2025;15:635-645.
- Zhou J, et al. Global burden of alopecia areata and associated diseases: A trend analysis from 1990 to 2021. J Cosmet Dermatol. 2025;24:e70076.
- Jeon JJ, Lee S, Kim MS, Kim YS, Hong SH, Yon DK, et al. The burden of alopecia areata among United States, 2000-2021: A systematic analysis for the global burden of disease study 2021. J Am Acad Dermatol. 2025;S0190-9622(25)02673-8.
- Todorova L, Kluger N. Alopecia: A Google trends analysis of the past 5 years (2018-2023). Skin Appendage Disord. 2025;11:282-286.
- Pratt CH, King LEJr, Messenger AG, Christiano AM, Sundberg JP. Alopecia areata. Nat Rev Dis Primers. 2017;3:17011.
- Mistry J, Sibbald C. Clinical presentations and comorbidities of pediatric alopecia areata. Pediatr Dermatol. 2025;42 Suppl 1:5-11.
- Kuty-Pachecka M. Psychological and psychopathological factors in alopecia areata. Psychiatr Pol. 2015;49:955-964.
- Marahatta S, Agrawal S, Adhikari BR. Psychological impact of alopecia areata. Dermatol Res Pract. 2020;2020:8879343.
- Dainichi T, Iwata M, Kaku Y. Alopecia areata: What's new in the epidemiology, comorbidities, and pathogenesis J Dermatol Sci. 2023;112:120-127.
- Lintzeri DA, Constantinou A, Hillmann K, Ghoreschi K, Vogt A, Blume-Peytavi U. Alopecia areata - Current understanding and management. J Dtsch Dermatol Ges. 2022;20:59-90.
- Singh R, Kumar P, Kumar D, Aggarwal N, Chopra H, Kumar V. Alopecia areata: Review of epidemiology, pathophysiology, current treatments and nanoparticulate delivery system. Ther Deliv. 2024;15:193-210.
- Rizzetto G, De Simoni E, Gioacchini H, Molinelli E, Offidani A, Simonetti O. Fractionated CO2 laser in combination with topical tacrolimus for chronic alopecia areata: A case series study. Life (Basel). 2024;14:1128.
- Gasques L, de Brito FF, Zobiole R, Bortolini L, Assumpção VCC, Carvalho CL. Corticosteroid atrophy plaque on the scalp treated with 5-fluourouracil and bleomycin infusion in the MMP technique. Skin Appendage Disord. 2024;10:425-428.
- Lee D, et al. Serum levels of IL-18 and sIL-2R in patients with alopecia areata receiving combined therapy with oral cyclosporine and steroids. Exp Dermatol. 2010;19:145-147.
- Mlacker S, et al. A review on laser and light-based therapies for alopecia areata. J Cosmet Laser Ther. 2017;19:93-99.
- Jafari MA, Bazgir G, Hosseini-Baharanchi FS, Jafarzadeh A, Goodarzi A. Efficacy and safety of laser therapy and phototherapy in cicatricial and noncicatricial alopecia: A systematic review study. Health Sci Rep. 2024;7:e70180.
- Civaş E, Aksoy B, Aksoy HM, Eski M, Yucel K. Hair transplantation for therapy-resistant alopecia areata of the eyebrows: is it the right choice J Dermatol. 2010;37:823-826.
- King BA, Craiglow BG. Janus kinase inhibitors for alopecia areata. J Am Acad Dermatol. 2023;89:S29-S32.
- Chim I, Ghiya R, Sinclair RD, Eisman S. Novel investigational drugs for alopecia areata and future perspectives. Expert Opin Investig Drugs. 2024;33:441-449.
- Valdez-Zertuche JA, Ramírez-Marín HA, Tosti A. Efficacy, safety and tolerability of drugs for alopecia: A comprehensive review. Expert Opin Drug Metab Toxicol. 2025;21:347-371.
- Liu M, et al. Janus kinase inhibitors for alopecia areata: A systematic review and meta-analysis. JAMA Netw Open. 2023;6:e2320351.
- Sohn KC, et al. Effect of thioredoxin reductase 1 on glucocorticoid receptor activity in human outer root sheath cells. Biochem Biophys Res Commun. 2007;356:810-815.
- Sun C, Ding HH, Zhang L, Wang JL, Su MY. Co-regulatory mechanisms and potential markers of oxidative stress-related genes in vitiligo and alopecia areata. Skin Res Technol. 2024;30:e70001.
- Perlmutter J, et al. The role of reactive oxygen species in the pathogenesis of alopecia areata: A systematic review and meta-analysis. Skin Pharmacol Physiol. 2025;38:59-67.
- Xie B, Sun JY, Song XZ. Hair follicle melanocytes initiate autoimmunity in alopecia areata: A trigger point. Clin Rev Allergy Immunol. 2022;63:417-430.
- Shin JM, et al. The crosstalk between PTEN-induced kinase 1-mediated mitophagy and the inflammasome in the pathogenesis of alopecia areata. Exp Dermatol. 2024;33:e14844.
- Mustafa AI, Khashaba RA, Fawzy E, Baghdady SMA, Rezk SM. Cross talk between oxidative stress and inflammation in alopecia areata. J Cosmet Dermatol. 2021;20:2305-2310.
- Cohen JN, et al. Regulatory T cells in skin mediate immune privilege of the hair follicle stem cell niche. Sci Immunol. 2024;9:eadh0152.
- Kinoshita-Ise M, Martinez-Cabriales SA, Alhusayen R. Chronological association between alopecia areata and autoimmune thyroid diseases: A systematic review and meta-analysis. J Dermatol. 2019;46:702-709.
- Chen DY, Yang XY, Wang HX, Fan WL, He YQ. Molecular mechanism of polygonum multiflorum in the treatment of androgenic alopecia: based on bioinformatics and molecular docking method. Diagnosis and Therapy Journal of Dermato-Venereology 2022;29:101–108.
- Iwasa K, et al. Long term administration of loquat leaves and their major component, ursolic acid, attenuated endogenous amyloid-β burden and memory impairment. Sci Rep. 2023;13:16770.
- Makovi CM, Parker CH, Zhang K. Determination of amygdalin in apricot kernels and almonds Using LC-MS/MS. J AOAC Int. 2023;106:457-463.
- Li XJ, et al. Identifying the active components and mechanisms of Persicae Semen in treating androgenetic alopecia: Insights from network pharmacology and experimental evaluations. J Ethnopharmacol. 2025;347:119755.
- Wang Q, et al. Amygdalin alleviates psoriasis-like lesions by improving skin barrier function. Arch Dermatol Res. 2025;317:115.
- Li SY, et al. Effects of amygdalin on ferroptosis and oxidative stress in diabetic retinopathy progression via the NRF2/ARE signaling pathway. Exp Eye Res. 2023;234:109569.
- Kimura K, Liu YH, Hsieh CL. Amygdalin's neuroprotective effects on acute ischemic stroke in rats. J Ethnopharmacol. 2025;345:119621.
- He X, et al. Amygdalin ameliorates alopecia areata on C3H/HeJ mice by inhibiting inflammation through JAK2/STAT3 pathway. J Ethnopharmacol. 2024;331:118317.
- He X, et al. The antiinflammatory effects of Xuefu Zhuyu decoction on C3H/HeJ mice with alopecia areata. Phytomedicine. 2021;81:153423.
- Ma LP, et al. Melatonin inhibits senescence-associated melanin pigmentation through the p53-TYR pathway in human primary melanocytes and the skin of C57BL/6 J mice after UVB irradiation. J Mol Med (Berl). 2023;101:581-593.
- Hou Y, et al. Longzhibu disease and its therapeutic effects by traditional Tibetan medicine: Ershi-wei Chenxiang pills. J Ethnopharmacol. 2020;249:112426.
- Hou Y, Fan FH, Xie N, Zhang Y, Wang XB, Meng XL. Rhodiola crenulata alleviates hypobaric hypoxia-induced brain injury by maintaining BBB integrity and balancing energy metabolism dysfunction. Phytomedicine. 2024;128:155529.
- Hou Y, et al. Salidroside intensifies mitochondrial function of CoCl2-damaged HT22 cells by stimulating PI3K-AKT-MAPK signaling pathway. Phytomedicine. 2023;109:154568.
- Fan FH, et al. Association between systemic immune-inflammation indexes and Nuodikang capsule’s protection in LPS-induced acute lung injury in mice. Phytomedicine. 2025;147:157229.
- Wang XB, et al. Mechanistic insights into salidroside's mitochondrial protection via AMPK/Sirt1/HIF-1α pathway in hypoxic HT22 cells. JoVE. 2025;218:e66923.
- Wang XB, et al. Rhodiola crenulata attenuates apoptosis and mitochondrial energy metabolism disorder in rats with hypobaric hypoxia-induced brain injury by regulating the HIF-1α/microRNA 210/ISCU1/2(COX10) signaling pathway. J Ethnopharmacol. 2019;241:111801.
- Fan SJ, et al. PRMT5 encourages cell migration and metastasis of tongue squamous cell carcinoma through methylating ΔNp63α. Cell Death Differ. 2026; 33:465-479.
- Zhao Y, et al. Integrated analysis reveals that EGR1 promotes epithelial IL33 production in T2 asthma. J Transl Med. 2025;23:203.
- He XY, Wu LJ, Wang WX, Xie PJ, Chen YH, Wang F. Amygdalin - A pharmacological and toxicological review. J Ethnopharmacol. 2020;254:112717.
- Alan-Albayrak E, Simonsen U. Cyanide beyond toxicity: A systematic review of its effects on vascular function. Basic Clin Pharmacol Toxicol. 2025;137:e70124.
- Lachowicz JI, Alexander J, Aaseth JO. Cyanide and cyanogenic compounds-toxicity, molecular targets, and therapeutic agents. Biomolecules. 2024;14:1420.
- Jaszczak-Wilke E, Polkowska Ż, Koprowski M, Owsianik K, Mitchell AE, Bałczewski P. Amygdalin: Toxicity, anticancer activity and analytical procedures for its determination in plant seeds. Molecules. 2021;26:2253.
- Deeths MJ, Endrizzi BT, Irvin ML, Steiner LP, Ericson ME, Hordinsky MK. Phenotypic analysis of T-cells in extensive alopecia areata scalp suggests partial tolerance. J Invest Dermatol. 2006;126:366-373.
- Garzorz N, et al. Dissecting susceptibility from exogenous triggers: the model of alopecia areata and associated inflammatory skin diseases. J Eur Acad Dermatol Venereol. 2015;29:2429-2435.
- Belpaire A, Demeyer A, Van Caelenberg E, van Geel N, Speeckaert R. The AhR pathway is dysregulated in alopecia areata. J Transl Autoimmun. 2025;10:100282.
- Gilhar A, Schrum AG, Etzioni A, Waldmann H, Paus R. Alopecia areata: Animal models illuminate autoimmune pathogenesis and novel immunotherapeutic strategies. Autoimmun Rev. 2016;15:726-735.
- Oelert T, Gilhar A, Paus R. T-cell "induced-self" MHC class I/peptide complexes may enable "de novo" tolerance induction to neo-antigens occurring outside of the thymus: Lessons from the hair follicle. Exp Dermatol. 2017;26:529-531.
- Freyschmidt-Paul P, et al. Interferon-γ-deficient mice are resistant to the development of alopecia areata. Br J Dermatol. 2006;155:515-521.
- Lensing M, Jabbari A. An overview of JAK/STAT pathways and JAK inhibition in alopecia areata. Front Immunol. 2022;13:955035.
- Suzuki T, et al. Interleukin-15 is a hair follicle immune privilege guardian. J Autoimmun. 2024;145:103217.
- Fitzhugh MH, Hansen JG, Jabbari A, Berrebi KG. Pathophysiology of Alopecia Areata in the Pediatric Patient. Pediatr Dermatol. 2025;42:24-30.
- Ma YQ, Sun Z, Li YM, Xu H. Oxidative stress and alopecia areata. Front Med (Lausanne). 2023;10:1181572.
- Bakry OA, Elshazly RM, Shoeib MA, Gooda A. Oxidative stress in alopecia areata: A case-control study. Am J Clin Dermatol. 2014;15:57-64.
- Peterle L, Sanfilippo S, Borgia F, Cicero N, Gangemi S. Alopecia areata: A review of the role of oxidative stress, possible biomarkers, and potential novel therapeutic approaches. Antioxidants (Basel). 2023;12:135.
- Yang X, et al. Exosomes derived from platelet-rich plasma promote hair regeneration by regulating the SIRT1/FoxO3a pathway to alleviate oxidative stress. Regen Ther. 2025;30:710-718.
- Xu SC, Huang P, Yang JH, Du HX, Wan HT, He Y. Calycosin alleviates cerebral ischemia/reperfusion injury by repressing autophagy via STAT3/FOXO3a signaling pathway. Phytomedicine. 2023;115:154845.
- Tang QY, et al. Orlistat facilitates immunotherapy via AKT-FOXO3a-FOXM1-mediated PD-L1 suppression. J Immunother Cancer. 2025;13:e008923.