Wij bieden een gedetailleerd, reproduceerbaar protocol voor het dissecteren, immunostaining en mounten van het visuele systeem van de ontwikkelende en volwassen Drosophila voor high-resolution imaging. Deze methoden maken de visualisatie van neuroblast-patronering, neuronale specificatie, targeting van fotoreceptoraxonen en de organisatie van het volwassen neuropil mogelijk, wat een veelzijdig kader biedt voor het bestuderen van de ontwikkeling van het visuele systeem.
Methodenartikel
Een Protocol voor Dissectie, Immunokleuring en Montage van het Visuele Systeem van Drosophila
In dit artikel
Samenvatting
Samenvatting
Het visuele systeem van Drosophila is een krachtig model om te onderzoeken hoe neuronale diversiteit wordt gegenereerd en geïntegreerd in functionele neurale circuits - een centrale vraag in de ontwikkelingsneurowetenschappen. Het bestaat uit het netvlies en vier verschillende neuropili: de lamina, medulla, lobula en lobula-plaat, die samen een zeer georganiseerde structuur vormen die visuele input van het netvlies verwerkt en doorstuurt naar de hogere centra van de hersenen. Tijdens de ontwikkeling ondergaat het visuele systeem een aanzienlijke remodellering. Gedurende de larvale ontwikkeling worden neuroblasten progressief gegenereerd vanuit het neuroepitheel en delen zij asymmetrisch om diverse neuronale subtypen te produceren door ruimtelijke en temporele patroonprogramma's te integreren. Deze neuronen differentiëren vervolgens en vormen precieze synaptische verbindingen die de functionele circuits van het volwassen visuele systeem opbouwen. Deze dynamische processen kunnen betrouwbaar worden bestudeerd met behulp van immunokleuring in de larvale, pop- en volwassen stadia. Hierin bieden we een gedetailleerd, reproduceerbaar protocol voor het dissekeren en immunokleuren van het ontwikkelende en volwassen visuele systeem van Drosophila. We richten ons primair op representatieve beeldvorming van larvale neuroblasten om spatiotemporele patroonvorming en neuronale specificatie te belichten, en om de morfologie van de volwassen neuropilus te visualiseren. Dit biedt een robuust kader voor het visualiseren van het ontwikkelende visuele systeem van Drosophila.
Inleiding
Het visuele systeem van Drosophila melanogaster dient als een belangrijk ontwikkelingsmodel voor het onderzoeken van de cellulaire en moleculaire mechanismen die ten grondslag liggen aan de ontwikkeling van het zenuwstelsel. De sterk gestandaardiseerde structuren, de uitgebreide genetische instrumentarium en de geconserveerde ontwikkelingsprocessen hebben ons begrip van de ontwikkeling van neurale stamcellen, neuronale specificatie, circuitassemblage en hersenorganisatie bevorderd. Het visuele systeem van de vlieg bestaat uit het netvlies van het samengestelde oog en vier optische neuropili — lamina, medulla, lobula en lobula plate — gerangschikt in een complex hiërarchisch circuit1. De sensorische fotoreceptoren in het netvlies detecteren licht en zetten dit om in neurale signalen2,3,4. Deze signalen passeren lokale interneuronen en projectieneuronen die de vier optische neuropili met elkaar verbinden, waar opeenvolgende verwerkingsstadia visuele kenmerken zoals contrast, beweging en kleur extraheren4,5. De verwerkte visuele informatie wordt vervolgens via visuele projectieneuronen naar hogere hersencentra getransporteerd voor verdere integratie4,5,6.
De ontwikkelende optische lob ondergaat een reeks nauwkeurig getimede ontwikkelingsgebeurtenissen die een prolifererend neuroepitheel (NE) transformeren tot een complex neuraal circuitnetwerk7,8. Het NE is afkomstig van de optische placode tijdens de embryogenese7,8. Tijdens de larvale stadia prolifereren neuroepitheliale cellen aanvankelijk via symmetrische delingen om de pool van progenitorcellen uit te breiden. Vervolgens gaan ze geleidelijk over in neuroblasten, die asymmetrisch delen om neuronen en gliacellen van het volwassen visuele systeem te genereren9,10,11,12,13. Spatio-temporele patroonmechanismen diversifiëren de neuronale identiteiten, waarbij nieuw gegenereerde neuronen concentrische lagen vormen binnen de ontwikkelende medulla en vervolgens differentiëren tot functionele circuits tijdens de popontwikkeling14,15,16,17,18,19. De integratie van spatiotemporele signalen activeert celtype-specifieke neuronale transcriptiefactoren, waarvan de aanhoudende expressie de neuronale celtypen specificeert14,15,20,21,22. Vergelijkbare mechanismen bestaan in de lamina en lobula om neuronale identiteiten te specificeren14,23,24,25,26.
Immunofluorescentie-imaging van het ontwikkelende visuele systeem is de voorkeursmethode geworden voor het visualiseren van de cellulaire en moleculaire gebeurtenissen die ten grondslag liggen aan de ontwikkeling ervan. Een succesvolle visualisatie hangt niet alleen af van de preparatie van hoogwaardige weefselmonsters en betrouwbare immunostaining-reagentia, maar ook van een zorgvuldige dissectie en een nauwkeurige oriëntatie van het monster tijdens het mounten27,28. Verschillende ontwikkelingsstructuren en cellulaire processen vereisen dat monsters op specifieke wijzen worden georiënteerd om de anatomische kenmerken van de hersenen zichtbaar te maken. In diverse artikelen en protocollen is de dissectie en immunostaining van het Drosophila-brein gedetailleerd beschreven28,29,30,31,32. Slechts enkelen hebben dit echter behandeld in de context van een veelbestudeerd ontwikkelingsproces in het visuele systeem27.
Hier presenteren we een uitgebreid protocol voor de dissectie, immunokleuring en het mounten van visuele systemen van larven en volwassenen. Een eenvoudige, kostenefficiënte methode voor de dissectie van het larvale brein maakt gebruik van algemeen beschikbare injectienaalden, waardoor de procedure gemakkelijk toegankelijk is voor laboratoria en onderwijsinstellingen met beperkte gespecialiseerde dissectie-instrumenten. We demonstreren het protocol aan de hand van representatieve voorbeelden, waaronder de visualisatie van de overgang van het larvale neuroepithelium naar neuroblasten (NE naar NB), de concentrische neuronale organisatie binnen de ontwikkelende medulla en de neuropillen van de optische lob bij volwassenen. We geven daarnaast voorbeelden die analyses illustreren van ruimtelijke en temporele patroonvorming en de targeting van fotoreceptoren in het ontwikkelende en volwassen visuele systeem. Samen bieden deze procedures en gedefinieerde mount-oriëntaties een praktisch kader voor het verkrijgen van reproduceerbare, hoogwaardige beelden van het ontwikkelende en volronge Drosophila visuele systeem voor neurodevelopmentale studies.
Protocol
1. Voorbereiding van reagentia en apparatuur
Voor een succesvolle dissectie en immunostaining van het visuele systeem van Drosophila is het noodzakelijk om alle reagentia en apparatuur voor te bereiden voordat het experiment wordt gestart. Het vooraf klaarmaken van alle oplossingen minimaliseert de tijd dat het weefsel wordt gehanteerd en helpt de morfologie van het weefsel gedurende de procedure te behouden. De volgende reagentia moeten worden voorbereid en bij de hand worden gehouden:
- Fosfaatgebufferde zoutoplossing (1x PBS): Bereid 1x PBS voor uit een 10x stockoplossing voor weefseldissectie, wassen en de bereiding van reagentia. PBS biedt een isotone omgeving die de integriteit van het weefsel tijdens de hantering behoudt. Bewaar 1x PBS bij 4 °C.
- Dissectiemedium: Gebruik voor de dissectie ijskoud Schneider's insectmedium. Schneider's medium is geformuleerd om Drosophila -weefsels te ondersteunen door de ionische samenstelling van insectenhemolymfe nauwkeurig na te bootsen en wordt aanbevolen voor langdurige dissecties.
- Fixeeroplossing (4% formaldehyd in 1x fosfaatgebufferde zoutoplossing met Triton X-100 (PBST)): Bereid een verse 4% formaldehydoplossing uit een 16% formaldehydstock in 1x PBST om optimale fixatie en weefselconservering te garanderen.
WAARSCHUWING: Formaldehyd is zeer reactief en toxisch bij inademing, inslikken of opname via de huid. Hanteer dit in een chemische zuurkast met gebruik van geschikte persoonlijke beschermingsmiddelen (PBM) en voer het af in de daarvoor bestemde gevaarlijke afvalstroom voor formaldehyd. - Wasbuffer (1x PBST): Bereid PBST (1x PBS met 0,3% Triton X-100) voor gebruik als was- en permeabilisatiebuffer.
- Blokkeeroplossing: Gebruik ofwel 5% runder-serumalbumine (gemaakt van 30% BSA in 1x PBST) of 5% normaal geiten serum (5% NGS in 1x PBST) als blokkeeroplossing. Dit helpt om aspecifieke antilichaambinding te verminderen. Bewaar bij 4 °C voor langdurig gebruik.
- Voorbereiding van Sylgard-gecoate platen: Sylgard-gecoate dissectieschaaltjes bieden een zacht oppervlak dat weefsels immobiliseert en de fijne punten van pincetten beschermt. Meng Sylgard 184-basis en het uithardingsmiddel in een verhouding van 10:1 tot ze volledig gecombineerd zijn. Giet dit in Petrischalen voor een gelijkmatige laag en laat het vervolgens 2–4 dagen uitharden bij 37 °C tot het droog is. De potlife van gekatalyseerd Sylgard 184 bij kamertemperatuur (22–25 °C) is ongeveer 2 u; gebruik het mengsel dus binnen deze tijd.
- Koel alle dissectiemedia en buffers vooraf af en houd ze op ijs tijdens de monstervoorbereiding, dissectie en immunokleuring om de weefselmorfologie te behouden en degradatie te verminderen. Zorg ervoor dat vóór aanvang van het protocol alle dissectie-instrumenten, microscopische objectglazen, dekglasjes, monteermedium en pincetten of dissectienaalden klaarliggen en gemakkelijk toegankelijk zijn. Verzamel vliegen of larven in het juiste ontwikkelingsstadium en houd ze gereed voor dissectie.
Er was geen ethische goedkeuring of richtlijn vereist om met Drosophila melanogaster te werken.
2. Dissectie, immunovleuring en montage van het larvale brein
- Dissectie:
- Verzamel de 8–10 rondtrekkende Drosophila-larven in het derde stadium uit het vial met een vochtig penseel en was ze in een glazen spotplaat met ijskoud 1X PBS om voedselresten te verwijderen.
- Breng met een pincet of een klein penseel één enkele larve over van de glazen spotplaat naar de druppel ijskoud 1X PBS of Schneider's medium in het centrum van de 150 mm Petri-schaal (zonder Sylgard).
- Houd de larve in het mid-lichaamsgebied vast met een 1 mL spuitnaald met de niet-dominante hand. Maak met de dominante hand een transversale snede met de spuitnaald op dezelfde positie, waardoor de larve in twee helften wordt gesneden (Figuur 1A–B).
WAARSCHUWING: Spuitnaalden zijn scherp en kunnen letsel veroorzaken. Voer gebruikte naalden af in een daarvoor bestemde naaldencontainer. - Houd de anterieure helft van de larve (identificeerbaar aan de zwarte mondhaken) bij de snijkant vast met de niet-dominante hand. Duw met de spuitnaald in de dominante hand de mondhaken voorzichtig naar binnen door de lichaamsholte, alsof u een sok binnenstebuiten keert. Door deze handeling wordt de larvale cuticula geëverteerd, waardoor een binnenstebuiten-preparaat ontstaat. De methode van binnenstebuiten-dissectie is sneller en helpt om schade aan het brein en de oogschijven te voorkomen (Figuur 1C–D).
- Zodra de cuticula is geëverteerd, is het brein zichtbaar, gehecht aan de imaginale schijven en mondhaken. Verwijder met een spuitnaald ongewenst weefsel, waaronder de darm, speekselklieren en vetlichaam (Figuur 1E).
- Breng het gedissecteerde brein over naar de glazen spotplaat met 300 µL ijskoud 1X PBS, die op ijs wordt bewaard (Figuur 1F).
- Herhaal stappen 2.1.2–2.1.6 totdat er voldoende breinen zijn gedissecteerd of totdat er 20 min zijn verstreken.
OPMERKING: De dissectietijd mag 20 min niet overschrijden om een hoge weefselkwaliteit te behouden. - Gebruik een 200 μL pipet om het grootste deel van de buffer bij de breinen weg te zuigen, waarbij er net genoeg overblijft om ze ondergedompeld te houden.
- Fixatie: Voeg 200 μL koude fixatievloeistof (4% formaldehyde) toe aan de breinen in de dissectieschaal en dek deze af met een microscopisch glasplaatje. Plaats de schaal vervolgens 20 min op de benchtop-rocker met een schudspeed van 28 en een schudhoek van 8°.
OPMERKING: Vermijd hoge schudsnelheden om weefseldesintegratie te voorkomen.
WAARSCHUWING: Formaldehyde is gevaarlijk. Draag geschikte PBM, waaronder handschoenen, een laboratoriumjas, een mondmasker en oogbescherming bij het hanteren van oplossingen die formaldehyde bevatten. - Zuig de fixatievloeistof af en voeg vervolgens 200 μL wasbuffer toe (1X PBS met 0,3% Triton X-100). Voer twee korte PBST-spoelingen uit, gevolgd door twee wasbeurten van 20 min.
OPMERKING: Triton X-100 is een detergent dat essentieel is voor het permeabiliseren van weefselmonsters en het faciliteren van antilichaampenetratie. - Blocking: Zuig de PBST af en voeg blocking-oplossing (5% Normal Goat Serum of 5% BSA in 1x PBST) toe aan de breinen. Incubeer 40 min bij kamertemperatuur.
OPMERKING: Incubatie in blocking-oplossing verzadigt aspecifieke bindingsplaatsen in het weefsel, waardoor achtergrondkleuring wordt verminderd en de specificiteit van het antilichaam toeneemt. Deze stap wordt aanbevolen, hoewel deze kan worden overgeslagen als de antilichaamkleuring specifiek is en minimale achtergrond vertoont.
- Immunokleuring
- Bereid de cocktail van primaire antilichamen voor in de aanbevolen verdunning in ongeveer 50 μL was-PBST.
OPMERKING: Bewaar antilichaam-aliquots tijdens de bereiding op ijs om de stabiliteit en activiteit van de antilichamen te behouden. - Breng de breinen over van de glazen put naar de 1,5 mL microcentrifugebuisjes. Verwijder de overtollige blocking-oplossing van de breinen, waarbij er genoeg overblijft om ze ondergedompeld te houden.
- Bereid de antilichaamcocktailoplossing en voeg deze toe aan de buis met breinen. Meng voorzichtig door te pipetteren met een 20 µL pipetpunt om een gelijkmatige verdeling van de antilichamen te garanderen.
OPMERKING: Het incuberen van breinen in een 50 µL primaire antilichaamoplossing vermindert het antilichaamverbruik zonder de kleuringskwaliteit aan te tasten. - Incubeer de buisjes met breinen in een rek gedurende 16 u bij 4 °C.
OPMERKING: Incubatie met primaire antilichamen kan in sommige gevallen 48–72 u bij 4 °C worden uitgevoerd om de kleuring te verbeteren. Primaire antilichamen kunnen ten minste 3 keer worden hergebruikt zonder dat de kleuringskwaliteit afneemt. - Voeg 200 μL PBST toe. Voer 2 korte wasbeurten uit, gevolgd door 2 lange wasbeurten van elk 20 min.
- Bereid de cocktail van secundaire antilichamen voor in de aanbevolen verdunningen in ongeveer 250 μL was-PBST.
OPMERKING: Voer alle incubaties na toevoeging van de secundaire antilichamen in het donker uit om blootstelling aan licht te vermijden, wat photobleaching kan veroorzaken. - Verwijder overtollig PBST en voeg vervolgens de secundaire antilichaamcocktail toe aan de breinen. Incubeer 2 u bij kamertemperatuur (22–25 °C) of 16 u bij 4°C op een rocker, afgedekt met een kartonnen doos om het donker te houden.
- Herhaal de bovenstaande wasstappen (2 korte spoelingen, gevolgd door 2 lange wasbeurten van elk 20 min) met PBST.
PAUSEPUNT: Breinen kunnen tot 1 week in PBST bij 4 °C worden bewaard. Het wordt echter aanbevolen om de monsters zo snel mogelijk na het mounten te beelden om signaalverlies door weefseldegradatie of verval van fluoroforen te minimaliseren.
- Bereid de cocktail van primaire antilichamen voor in de aanbevolen verdunning in ongeveer 50 μL was-PBST.
- Mounting van larvale optische lobben
- Bereid een microscopieplaatje voor door het te reinigen met 70% ethanol en laat het 5 min drogen (Figuur 2E).
- Breng twee parallelle stroken dubbelzijdige tape aan in het midden van het microscopieplaatje, met een tussenruimte van 5–10 mm tussen de stroken.
- Breng de breinen met een 200 µL pipet met een afgesneden punt over naar een ander schoon microscopieplaatje en verwijder ongewenst weefsel, zoals imaginale schijven van de poten, die het interessegebied tijdens het beelden kunnen obstructeren.
OPMERKING: Kleine weefselstukjes die ons interessegebied tijdens het beelden niet obstructeren, kunnen tijdens het mounten ongemoeid worden gelaten. - Breng de breinen over naar het microscopieplaatje met de dubbelzijdige tape.
OPMERKING: Zorg ervoor dat de breinen niet uitdrogen en altijd ondergedompeld blijven in de 1x PBST-buffer. - Stel de anterieure-posterieure oriëntatie van elk larvaal brein vast onder een stereomicroscoop, waarbij de karakteristieke bolvormige morfologie van het brein en de positie van het ventrale zenuwkoord (VNC) als anatomische referentiepunten dienen (Figuur 2A–D).
- Anterieure mounting: Positioneer het brein met de bolle zijde naar boven, weg van het plaatje, en de VNC naar het plaatje toe (Figuur 2A, Figuur 3A).
- Posterieure mounting: Positioneer het brein met de bolle zijde naar het plaatje toe en de VNC van het plaatje af (Figuur 2B, Figuur 3F).
- Laterale mounting: Splits het anterieur gemonteerde brein en VNC langs de middellijn met een 1 mL spuitnaald of een fijne wolfraamnaald om twee hemisecties van het brein te verkrijgen (Figuur 2C). Roteer elke hemisfeer met 90° en positioneer deze met de laterale, lobula-plug-zijde naar het dekglas toe en het mediale snijvlak weg van het beeldvlak (Figuur 2D, Figuur 3K).
OPMERKING: Pas de positie van het brein onder de stereomicroscoop naar behoefte aan om de gewenste oriëntatie te verkrijgen. Houd het brein tijdens het positioneren ondergedompeld. - Zuig het grootste deel van de buffer af, waarbij er genoeg overblijft om de breinen ondergedompeld te houden.
- Voeg 20–40 μL mounting-medium (SlowFade Gold Antifade) toe aan het gebied met de breinen en verspreid dit gelijkmatig met een 20 μL pipet.
- Plaats voorzichtig een dekglas zodanig dat het op beide tape-stroken rust en verzegel de randen met nagellak.
OPMERKING: Als er na het plaatsen van het dekglas grote bellen ontstaan, voeg dan meer mounting-medium toe in de opening tussen het dekglas en het plaatje totdat de bellen verdwijnen.
3. Dissectie, immunokleuring en montage van het volwassen brein
- Dissectie: De dissectie van het volwassen brein is technisch uitdagender en vereist een zorgvuldige hantering. Het wordt sterk aanbevolen om een scherp paar roestvrijstalen pincetten te gebruiken voor de dissectie van het volwassen brein.
- Anestheseer een voldoende aantal volwassen vliegen van de vereiste leeftijd op een CO2-vliegpad, en breng ze vervolgens over naar het vochtige weefseldoekje op de ijsbak om de anesthesie tijdens de dissectie te handhaven.
OPMERKING: Na de anesthesie kunnen de vliegen tijdens de dissectie vochtig worden gehouden met een weefseldoekje op ijs, waardoor het CO2-pad niet aan hoeft te blijven en de hantering eenvoudiger wordt. - Pak de volwassen vlieg met fijne pincetten voorzichtig bij de poten op en plaats deze in de met Sylgard gecoate Petrischaal.
- Zet de vlieg vast op de met Sylgard gecoate plaat door een speld van bovenaf door het midden van het thorax door te steken, buiten het hersengebied. Dompel de vlieg onder in een druppel ijskoude 1X PBS-buffer/Schneider's Media en positioneer de kop van de vlieg voor de dissectie door de vlieg naar uzelf toe te draaien of de plaat te verschuiven.
WAARSCHUWING: Dissectiespelden zijn scherp en kunnen verwondingen veroorzaken. Gooi ze weg in een daarvoor bestemde naaldencontainer. - Verwijder met pincetten in de dominante hand voorzichtig de proboscis en het frontale cuticula tussen de ogen om het brein gedeeltelijk bloot te leggen. Dit creëert een opening onder het retinale cuticula zodat de pincetten de daaropvolgende dissectie van het brein kunnen vergemakkelijken.
- Pak met fijne pincetten voorzichtig de retina bij de buitenste randen vast en trek deze aan beide zijden uiteen. Pas op dat u de optic lobes niet doorprikt tijdens het afpellen van de retina.
- Verwijder zorgvuldig resterende weefsels, zoals de trachea of de voorgaast, die aan het brein vastzitten.
- Breng het schone brein over naar een glazen spotplaat met 200 µL 1X PBS, op ijs bewaard.
- Herhaal de dissectiestappen 3.1.2 tot 3.1.7 totdat er voldoende breinen zijn verzameld of er 30 min zijn verstreken.
- Gebruik een 200 µL pipet om de PBS van de breinen af te zuigen, waarbij net genoeg overblijft om ze ondergedompeld te houden.
- Fixatie: Voeg 200 μL koude fixatieoplossing (4% formaldehyde in 1X PBS) toe aan de glazen spotplaat met de gedissecteerde volwassen breinen, en plaats de plaat, afgedekt met een microscopisch objectglas, 30 min op de benchtop-shaker bij een schudspeed van 28.
WAARSCHUWING: Formaldehyde is gevaarlijk. Draag geschikte handschoenen, een laboratoriumjas en oogbescherming bij het hanteren van oplossingen die formaldehyde bevatten. - Zuig de fixatieoplossing af, waarbij voldoende overblijft om de breinen onder te dompelen, en voeg 200 µL PBST toe. Herhaal dit met 3 korte wasbeurten en 2 lange wasbeurten van elk 20 min.
- Blocking: Verwijder de PBST en incubeer de breinen gedurende 45 min in een blocking-oplossing (5% NGS of 5% BSA).
- Breng de breinen over naar een 1,5 mL buis en verwijder het grootste deel van de blocking-oplossing, waarbij net genoeg overblijft om de breinen ondergedompeld te houden.
- Anestheseer een voldoende aantal volwassen vliegen van de vereiste leeftijd op een CO2-vliegpad, en breng ze vervolgens over naar het vochtige weefseldoekje op de ijsbak om de anesthesie tijdens de dissectie te handhaven.
- Immunokleuring
- Bereid het primaire antilichaamcocktail voor in de juiste verdunning in 50 µL PBST.
- Voeg de primaire antilichaamcocktail toe aan de buis met breinen en incubeer 12–16 u bij 4 °C.
- Zuig de antilichaamoplossing af en voeg vervolgens PBST toe voor 2 korte spoelingen en 2 lange wasbeurten van elk 20 min.
- Bereid de secundaire antilichaamcocktail voor in de aanbevolen verdunningen in 250 µL PBST.
- Verwijder de PBST en voeg vervolgens de secundaire antilichaamcocktail toe. Incubeer op een benchtop-shaker bij kamertemperatuur (22–25 °C) gedurende 2 u of laat dit 12–16 u bij 4 °C in het donker gebeuren.
- Herhaal de wasbeurten (3 korte en 2 lange, elk gedurende 20 min).
PAUSEERPUNT: Pauzeer bij deze stap en bewaar de breinen in PBST bij 4 °C voor een week.
- Montage van volwassen optic lobes
- Bereid een microscopisch objectglas voor door het te reinigen met 70% ethanol.
- Bereid een dekglasbrug voor door twee dekglazen van 18 x 18 mm op een kleine druppel universele lijm te plaatsen om een ruimte (minder dan 1 mm) tussen hen te creëren voor de breinen (Figuur 2F).
- Breng met een afgeknipt 200 µL pipetpunt de gereinigde breinen over naar een objectglas en verwijder weefsels, zoals de trachea of het hoofdcuticula, die het zicht tijdens het imagen kunnen belemmeren.
- Breng de gereinigde breinen over naar de montagezijde die is voorbereid in stap 3.3.2.
OPMERKING: Houd de breinen gedurende de gehele montageprocedure ondergedompeld in 1x PBST en laat ze niet uitdrogen. - Stel onder een stereomicroscoop de anterieur-posterieure oriëntatie van elk volwassen brein vast aan de hand van de algemene morfologie. Het convexe oppervlak komt overeen met de anterieure zijde, terwijl het concave oppervlak overeenkomt met de posterieure zijde.
- Anterieure montage: Positioneer het brein zodanig dat het anterieure oppervlak en de antennaleben naar het dekglas gericht zijn (Figuur 4A).
- Posterieure montage: Positioneer het brein zodanig dat het posterieure oppervlak naar het dekglas is gericht en de antennaleben van het dekglas afgekeerd zijn (Figuur 4D).
- Laterale montage: Positioneer het brein zodanig dat de visuele neuropielen parallel aan het beeldvlak zijn georiënteerd. Plaats het brein in de anterieure positie, draai het 90° en steun het tegen de rand van het afstandhouder-dekglas (Figuur 4G).
- Zuig het grootste deel van de 1x PBS-buffer af, waarbij voldoende overblijft om de breinen ondergedompeld te houden.
- Voeg 40 μL montage medium (bij voorkeur VECTASHIELD Antifade Mounting Media) toe aan het gebied met de breinen, en verspreid dit vervolgens gelijkmatig met een 20 μL pipet. Voeg indien nodig meer montage medium toe.
OPMERKING: VECTASHIELD Antifade Mounting Media werkt goed met een dekglasbrug-objectglas omdat de hogere viscositeit helpt om in de ruimte tussen de dekglazen te blijven. - Plaats voorzichtig een dekglas van 22 x 22 mm zodanig dat het op de twee dekglazen rust. Verwijder eventuele luchtbellen door meer montage medium via de opening toe te voegen.
- Zegel de randen af met nagellak (Figuur 2F).
4. Beeldacquisitie en beeldbewerking
- Verwerf beelden met een Leica STELLARIS 8 confocale microscoop met 40x (NA = 1.3) en 63x olie-immersie (NA = 1.4) objectieven, met een resolutie van 1024 × 1024 pixels.
- Verzamel Z-stacks met een z-stap van 1 µm bij een scansnelheid van 200 Hz.
- Maak beelden met bidirectioneel scannen met een zoomfactor van 0,75–1,0x, afhankelijk van het monster.
- Voer de detectie uit bij een gain-instelling van 100 met de juiste detector voor elk fluorofoor.
OPMERKING: Gebruik excitatiegolflengten van 405, 488, 555 en 647 nm, en pas het laservermogen aan op basis van het antilichaam en het fluorofoor dat wordt afgebeeld. - Verwerf beelden met Leica-acquisitiesoftware en verwerk deze met Fiji/ImageJ2 versie 2.16.0/1.54p.
Resultaten
Een succesvolle dissectie, immunokleuring en correcte oriëntatie bij het mounten zijn essentieel om de algehele structuur van de ontwikkelende optic lobe te behouden en de anatomische kenmerken, ontwikkelingsfasen en celtypen nauwkeurig vast te leggen. Verschillende montage-oriëntaties bieden complementaire weergaven van de visuele systemen van larvale en volwassen Drosophila en maken het mogelijk om verschillende anatomische regio's en neuronale kenmerken te visualiseren.
Oriëntaties voor het mounten van larven:
Deze sectie illustreert representatieve montage-oriëntaties die beeldvorming van de ontwikkelende optische lob van de larve faciliteren (Figuur 3). Het schema van het larvale brein benadrukt de belangrijkste structuren van de optische lob, waaronder de OPC, medulla en lamina (Figuur 3A). Een anterieure montage toont de OPC, de overgang van neuroepitheel naar neuroblast (NE-naar-NB), de band van medulla-neuroblasten en de ontwikkelende lamina. Een anterieur gemonteerd brein, gekleurd met Deadpan (Dpn), E-Cadherine (ECad) en Dachshund (Dac), brengt deze structuren in beeld (Figuur 3B). Deze oriëntatie maakt ook de temporele transcriptiefactorcascade in medulla-neuroblasten zichtbaar, zoals aangetoond door de sequentiële expressie van Hth, Opa, Erm en Ey (Figuur 3C). Fotoreceptoraxonen, gelabeld met anti-Chp-antilichamen en afgewisseld met lamina-neuronen, kunnen eveneens in de anterieure oriëntatie worden gevisualiseerd (Figuur 3D, E). Posterieure montage legt het innerlijke proliferatiecentrum (IPC) en de uiteinden van de OPC bloot, wat complementaire beelden geeft van de ontwikkelende optische lob (Figuur 3F, G-H). Fotoreceptoraxonen (Chp-positief) afgewisseld met lamina-neuronen kunnen ook in de posterieure oriëntatie worden gevisualiseerd (Figuur 3I, J). Samen met de anterieure montage biedt deze oriëntatie complementaire toegang tot verschillende regio's van het ontwikkelende visuele systeem van de larve. Laterale montage onthult het ruimtelijke patroon van de OPC samen met de concentrische organisatie van de neuronen (Figuur 3K). Laterale montage biedt gelijktijdig een beeld van de concentrische organisatie van medulla-neuronen (Figuur 3L). Representatieve neuronale populaties omvatten ruimtelijk domein-agnostische Bsh-positieve intrinsieke medulla-neuronen (Mi1) en TfAP-2-positieve transmedullaire neuronen (Tm1, Tm2, Tm4 en Tm6), alsook regio-specifieke neuronale subtypen zoals Dm8, DRA-Dm8 en Dm11 (Figuur 3L). Vsx en Optix (Optix-GAL4>GFP) zijn aanwezig in het neuroepitheel (NE) maar niet in neuroblasten (NB), terwijl Rx in zowel het NE als de NB's wordt aangetroffen19. Daarnaast worden Vsx en Rx tot expressie gebracht in specifieke post-mitotische neuronen die overeenkomen met hun ruimtelijke domeinen19 (Figuur 3M). Fotoreceptoraxonen die op de lamina en medulla zijn gericht, kunnen in de laterale oriëntatie worden gevisualiseerd (Figuur 3N, O). Deze montage-oriëntaties maken analyse mogelijk van hoe het ruimtelijke en temporele patroon van medulla-neuroblasten leidt tot verschillende neuronale identiteiten14,22.
Montage-oriëntaties van volwassenen: Deze sectie presenteert een schema en een representatief voorbeeld van montage-oriëntaties voor beeldvorming van de optische lob van de volwassen Drosophila. Anterior montage biedt een frontaal zicht op de optische lob, waarbij de lamina, medulla en de anterieure aspecten van de lobula en lobula-plaat zichtbaar worden (Figuur 4A). Anti-Bruchpilot (Brp) labelt de optische neuropielen, terwijl Bsh de Mi1-neuronen in de medulla-cortex markeert (Figuur 4B). In dezelfde oriëntatie labelt anti-Chaoptine (Chp) fotoreceptoraxonen die projecteren naar de lamina en medulla (Figuur 4C). Posterieure montage-oriëntatie legt diepere regio's van de optische lob bloot, waardoor visualisatie van de medulla-neuropiel in diepte mogelijk is (Figuur 4D, E). In deze oriëntatie maakt Chp-kleuring fotoreceptorterminals binnen de medulla zichtbaar (Figuur 4F). Laterale montage biedt een zijzicht van de optische lob, wat gelijktijdige visualisatie van de lamina, medulla, lobula en lobula-plaat mogelijk maakt (Figuur 4G, H). Bsh labelt lamina-neuronen (L4 en L5) samen met intrinsieke medulla-neuronen (Mi1), terwijl Brp de grenzen van de neuropiel definieert. Fotoreceptorprojecties targeten binnen de lamina en medulla (Figuur 4I), wat een overzicht biedt van de organisatie van het visuele systeem van de volwassene.
Samen bieden de anterieure, posterieure en laterale montage-oriëntaties complementaire weergaven van de ontwikkelende en volwassen visuele systemen, waardoor onderzoekers verschillende anatomische regio's, ontwikkelingskenmerken en neuronale populaties kunnen bestuderen op basis van hun experimentele doelstellingen.
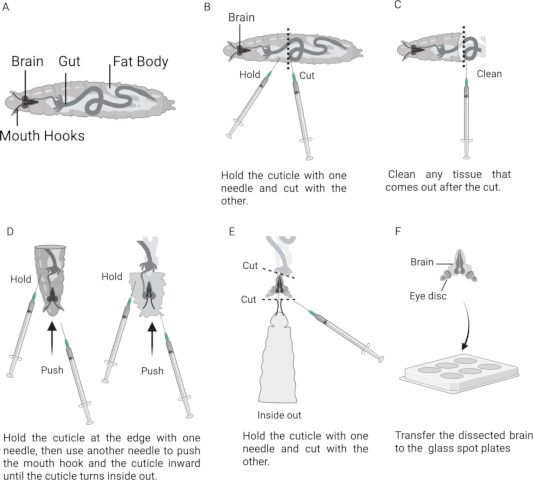
Figuur 1: Dissectie van het Drosophila-larvalenbrein met behulp van de spuitnaaldmethode. (A) Schema van een larve in het late derde stadium waarin de locatie van het brein en de bijbehorende anatomische structuren worden getoond. (B) Toont de larve gepositioneerd tussen twee spuitnaalden, waarbij de stippellijn de geschatte plaats van de transversale scheiding aangeeft. (C) Anterieur deel van de larve na verwijdering van het omringende weefsel. (D) Opeenvolgende stappen die de inversie van de larvale cuticula met spuitnaalden tonen. (E) Geëverteerde preparaat waarin het brein, de imaginale schijven en de mondhaken zichtbaar zijn. (F) Geïsoleerd larvalenbrein in een glazen spotplaat. Klik hier om een grotere versie van deze figuur te bekijken.
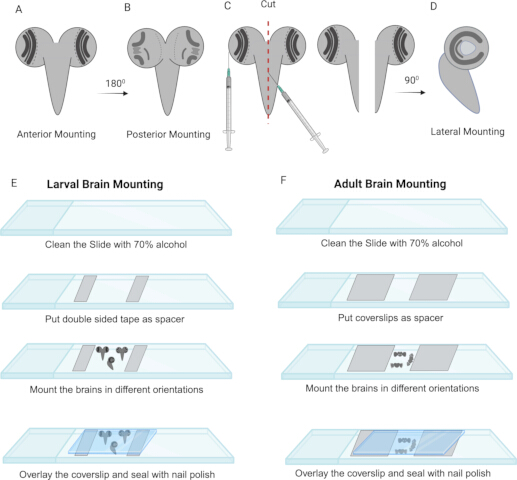
Figuur 2: Monteringsstappen voor de optische lobben van Drosophila-larven en volwassenen. (A) Anterior monteringsoriëntatie van het larvale brein. (B) Posterior monteringsoriëntatie van het larvale brein. (C) Bilaterale bisectie van het anterieur gemonteerde brein met behulp van een spuitnaald. (D) Laterale monteringsoriëntatie van het hemisectiebrein. (E) Representatieve stappen voor het monteren van het larvale brein. (F) Representatieve stappen voor het monteren van het volwassen brein. Klik hier om een grotere versie van deze figuur te bekijken.
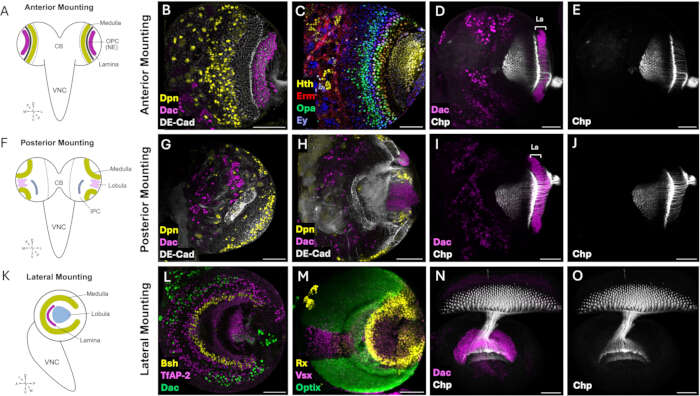
Figuur 3: Montage-oriëntaties voor beeldvorming van het visuele systeem van Drosophila-larven. (A) Schema dat de anterieure montage-oriëntatie van het brein van een derde-instar larve illustreert, waarbij het anterieure oppervlak naar het dekglas is gericht. (B) Representatieve confocale afbeelding van een anterieur gemonteerd larvaal brein waarop het outer proliferation center (OPC) gelabeld is met anti-DE-Cadherin (DE-CAD, grijs), medulla neuroblasten gelabeld met anti-Deadpan (Dpn, geel), en de ontwikkelende lamina gelabeld met anti-Dachshund (Dac, magenta). (C) Afbeelding van de medulla NB's die sequentieel de temporele transcriptiefactoren Homothorax (Hth), Odd-paired (Opa), Earmuff (Erm) en Eyeless (Ey) tot expressie brengen tijdens de neuroblastontwikkeling. (D-E) Representatieve afbeelding van fotoreceptoraxonen die vanuit de oog-imaginale schijf projecteren naar de ontwikkelende lamina en medulla. (F) Schema dat de posterieure montage-oriëntatie van het larvale brein illustreert, waarbij het posterieure oppervlak naar het dekglas is gericht. (G) Confocale afbeelding van het oppervlakkige posterieure oppervlak van de optische kwab waarop het inner proliferation center (IPC) en medulla neuroblasten gepositioneerd aan de uiteinden van de OPC (tOPC) te zien zijn. (H) Optische sectie verkregen dieper in de posterieure optische kwab, waarbij het IPC en de ontwikkelende lobula worden geaccentueerd. (I-J) Posterieur aanzicht van fotoreceptoraxonen die projecteren in de ontwikkelende optische kwab. (K) Schema dat de laterale montage-oriëntatie van een hemisectie van een larvaal brein illustreert, waarbij het gesneden mediale oppervlak naar het dekglas is gericht om de concentrische organisatie van de ontwikkelende medulla samen met de lamina en lobula-plug te visualiseren. (L) Representatieve confocale afbeelding die de concentrische rangschikking van medulla neuronenpopulaties toont, inclusief Mi1-neuronen gelabeld door Brain-specific homeobox (Bsh), Tm1, Tm2, Tm4 en Tm6 neuronen gelabeld door TfAP-2, Dachshund (Dac)-positieve Dm8-neuronen in de ventrale medulla, en DRA-Dm8 en Dm11 neuronen in het dorsale randgebied, wat de ruimtelijke organisatie van medulla neuron-subtypes illustreert. (M) Maximum intensity projectie van het outer proliferation center waarop de ruimtelijke patroondomeinen gedefinieerd door de transcriptiefactoren Vsx, Optix (Optix-GAL4>GFP) en Rx in de ontwikkelende optische kwab te zien zijn. (N-O) Representatieve afbeelding van fotoreceptoraxonen in de laterale montage-oriëntatie, waarop hun projecties en targeting binnen de ontwikkelende lamina en medulla zichtbaar zijn. Schaalbalk = 50 µm. Afkortingen: La = Lamina. Klik hier om een grotere versie van deze figuur te bekijken.
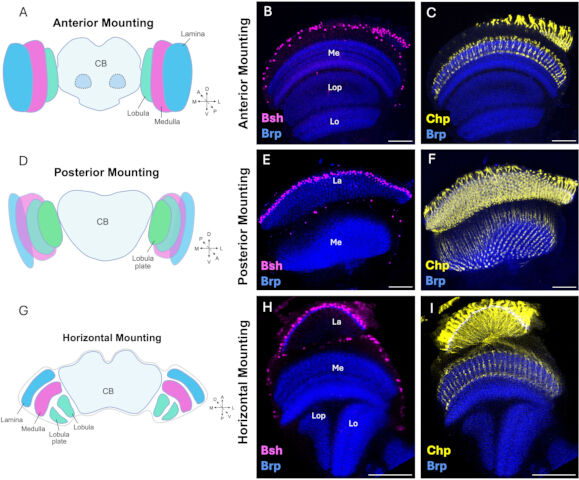
Figuur 4: Montage-oriëntaties voor beeldvorming van het visuele systeem van de volwassen Drosophila. (A) Schema dat de anterieure montage-oriëntatie van het volwassen brein illustreert, waarbij het anterieure oppervlak naar het dekglas is gericht. (B) Representatieve confocale afbeelding van een anterieur gemonteerd volwassen brein, met Brain-specific homeobox (Bsh)-positieve Mi1-neuronen (magenta) binnen de cortex van de medulla en neuropils gelabeld met anti-Bruchpilot (Brp, blauw). Deze oriëntatie biedt een anterieur zicht op de perifere lamina, medulla, lobula en lobula-plaat. (C) Representatieve afbeelding van fotoreceptoraxonen gelabeld met anti-Chaoptin (Chp, geel) die projecteren naar de neuropils van de lamina en medulla. (D) Schema dat de posterieure montage-oriëntatie van het volwassen brein illustreert, waarbij het posterieure oppervlak naar het dekglas is gericht. (E) Representatieve confocale afbeelding van het posterieur gemonteerde volwassen visuele systeem, waarbij de diepere lagen van de medulla neuropil gelabeld met anti-Brp worden benadrukt. (F) Posterieur zicht van fotoreceptoraxonen gelabeld met anti-Chaoptin (Chp, geel) die hun targeting binnen de medulla neuropil tonen. (G) Schema dat de laterale montage-oriëntatie van het volwassen brein illustreert, waarbij één optische lob parallel aan het dekglas is gepositioneerd om de algemene organisatie van het visuele systeem te visualiseren. (H) Representatief lateraal zicht van de optische lob van de volwassene, met Bsh-positieve lamina-neuronen (L4 en L5) en medulla Mi1-neuronen (magenta), samen met neuropils gelabeld met anti-Brp (blauw), wat de ruimtelijke organisatie van de lamina, medulla, lobula en lobula-plaat onthult. (I) Representatieve afbeelding van fotoreceptoraxonen gelabeld met anti-Chaoptin (Chp, geel) die projecteren in de neuropils van de lamina en medulla gelabeld met anti-Brp (blauw). Schaalbalk = 50 µm. Afkortingen: Me = Medulla; La = Lamina; Lo = Lobula; Lop = Lobula-plaat. Klik hier om een grotere versie van deze figuur te bekijken.
Discussie
Dit protocol biedt een betrouwbare methode voor het dissekeren, immunostainen en mounten van visuele systemen van larvale en adulte Drosophila voor resolutieconfocale beeldvorming. De procedure behoudt de structurele integriteit en morfologie van de ontwikkelende en mature optische lobben, terwijl het mount-oriëntaties biedt die een optimale visualisatie mogelijk maken van belangrijke ontwikkelingsprocessen, neuronale populaties en neuropilstructuren. Representatieve voorbeelden die worden beschreven zijn de overgang van neuroepithelium naar neuroblast (NE-naar-NB), spatiotemporele patroonvorming binnen de medulla, de axonale targeting van fotoreceptoren in de optische lob en de organisatie van neuropils in het adulte visuele systeem9,10,13,14,23. Dit protocol biedt daarom een flexibel kader dat gemakkelijk kan worden aangepast om andere processen of celtypen in elk ontwikkelingsstadium te visualiseren.
Vergeleken met eerder gepubliceerde methoden combineert dit protocol geoptimaliseerde procedures voor zowel het visuele systeem van larvale als adulte Drosophila en biedt het meerdere montage-oriëntaties die zijn afgestemd op verschillende experimentele vragen. Hoewel diverse gepubliceerde protocollen de dissectie en immunokleuring van het Drosophila-brein beschrijven28,29,30,31,32, richten relatief weinig zich specifiek op het visuele systeem in de context van ontwikkelingsprocessen27. Het protocol beschrijft een alternatieve dissectiemethode voor larven die gebruikmaakt van gemakkelijk beschikbare spuiten van 1 mL in plaats van gespecialiseerde fijne pincetten. Hoewel deze benadering een steilere leercurve vereist, biedt het een schoon, goedkoop en snel alternatief dat bijzonder waardevol kan zijn voor onderwijslaboratoria en onderzoeksgroepen met beperkte toegang tot gespecialiseerde dissectieapparatuur. Naar ons weten is deze dissectiemethode minder belastend voor het brein dan de pincetmethode, waarbij het brein tijdens de dissectie wordt getrokken, wat vaak tot letsel leidt. Bovendien maakt ons immunokleuringsprotocol doelmatig gebruik van antilichaamcocktails in gereduceerde volumes zonder de kleuringskwaliteit in gevaar te brengen, waardoor vaak dure commerciële antilichamen worden bespaard. Samen bieden deze kenmerken praktische voordelen op het gebied van toegankelijkheid, dissectie en montage, terwijl het protocol eenvoudig kan worden aangepast aan verschillende experimentele vereisten.
Een succesvolle uitvoering van het protocol hangt af van zorgvuldige aandacht voor enkele cruciale stappen. Veelvoorkomende problemen kunnen over het algemeen worden opgelost door de dissectie-, fixatie-, kleurings- of montageprocedures aan te passen. Overmatige mechanische stress tijdens de dissectie, het schudden of het pipetteren kan weefselschade of fragmentatie veroorzaken. Voer dissecties daarom snel uit in ijskoude PBS en gebruik voorzichtige bewegingen bij het verwijderen van omliggend weefsel en tijdens het daaropvolgende schudden en pipetteren. Gebrekkige fixatie, herkenbaar aan weefselvervorming, verlies van morfologie of inconsistente kleuring, kan het gevolg zijn van een onvoldoende fixatietijd of een inadequate fixatieoplossing. Het gebruik van vers bereide formaldehydeoplossing en het volledig onderdompelen van het weefsel tijdens de fixatie helpt om de weefselmorfologie en de consistentie van de kleuring te behouden. Zwakke of ongelijkmatige kleuring kan het gevolg zijn van onvoldoende permeabilisatie, inadequate antilichaampenetratie of een suboptimale antilichaaminkubatie. Het verlengen van de permeabilisatie- of antilichaamincubatietijd, en waar passend het verlengen van de incubatie van het primaire antilichaam bij 4 °C, kan de antilichaampenetratie en kleuring verbeteren. Een hoge achtergrondkleuring kan het gevolg zijn van inadequate blokkering of wassing, of van een te hoge antilichaamconcentratie. Adequate blokkering en wassing, samen met een passende aanpassing van de antilichaamconcentratie, kunnen helpen om aspecifieke kleuring te verminderen. Een onjuiste montage-oriëntatie kan het interessegebied maskeren of te ver van het dekglas positioneren. Het opnieuw oriënteren van het brein op basis van de anatomische kenmerken die in het protocol worden beschreven en het positioneren van het interessegebied dicht bij het dekglas kan de beeldvorming van het juiste anatomische kenmerk vergemakkelijken.
Ondanks de veelzijdigheid kan het protocol worden aangepast voor specifieke weefsels, ontwikkelingsstadia, antilichamen en beeldvormingsvereisten. Zo kunnen sommige weefsels baat hebben bij een kortere fixatie op ijs, terwijl bepaalde antilichamen een verlengde incubatie bij 4 °C tot een week kunnen vereisen, of omgekeerd, een kortere incubatie bij 22–25 °C. De fixatiekwaliteit kan worden beoordeeld aan de hand van het behoud van de algemene morfologie van de hersenen en de optische lob, duidelijke weefselgrenzen en minimale vervorming, fragmentatie of loslating. Op soortgelijke wijze kan een adequate permeabilisatie worden beoordeeld door een relatief uniforme antilichaamkleuring in het gehele weefsel, wat duidt op voldoende penetratie van het antilichaam. Deze overwegingen bieden de flexibiliteit om de fixatie-, permeabilisatie-, kleurings- en montagecondities aan te passen aan de specifieke experimentele toepassing, terwijl het visuele systeem van Drosophila behouden blijft.
Openbaarmakingen
De auteurs verklaren dat er geen belangenverstrengeling is. De auteurs hebben alle definitieve wijzigingen beoordeeld en goedgekeurd.
De tool voor taalbewerking (Grammarly) werd gebruikt om spellingcorrecties uit te voeren en zinnen te herstructureren.
Dankbetuigingen
De monoclonale antilichamen Brp, Dac, DE-Cad en Chp werden verkregen van de Developmental Studies Hybridoma Bank, opgericht door het NICHD van de NIH en beheerd door de University of Iowa, Department of Biology, Iowa City, IA 52242. A.B., A.R. en C.S. werden ondersteund door Tamkeen via de NYU Abu Dhabi Research Institute Award aan het NYU Abu Dhabi Center for Genomics and Systems Biology (ADHPG-CGSB) en door NIH RO1 EY017916 aan C.D.
Materialen
| Naam | Bedrijf | Catalogusnummer | Opmerkingen |
|---|---|---|---|
| Austerlitz insectenstabilisatiepinnen, 0,15 mm | Fine Science Tools | 26002-15 | |
| Antilichaam: Muis anti-Brp | Developmental Studies Hybridoma Bank | nc82 | Verdunning 1:50 |
| Antilichaam: Muis anti-Chp | Developmental Studies Hybridoma Bank | 24B10 | Verdunning 1:50 |
| Antilichaam: Rat anti-DE-CAD | Developmental Studies Hybridoma Bank | DCAD2 | Verdunning 1:20 |
| Antilichaam: Muis anti-Dac | Developmental Studies Hybridoma Bank | mAbdac1-1 | Verdunning 1:100 |
| Antilichaam: Schaap anti-GFP | BioRad | 4745-1051 | Verdunning 1:200 |
| Antilichaam: Konijn anti-Bsh | Desplan lab | - | Verdunning 1:1000 |
| Antilichaam: Guinea pig anti-Hth | Desplan lab | - | Verdunning 1:100 |
| Antilichaam: Cavia anti-TfAP-2 | Desplan-lab | - | Verdunning 1:500 |
| Antilichaam: Konijn anti-Ey | Desplan-lab | - | Verdunning 1:200 |
| Antilichaam: Rat anti-Erm | Desplan lab | - | Verdunning 1:100 |
| Antilichaam: cavia anti-Rx | Desplan-lab | - | Verdunning 1:300 |
| Antilichaam: Konijn anti-Vsx | Desplan lab | - | Verdunning 1:100 |
| Antilichaam: Donkey anti-muis IgG geconjugeerd aan Alexa Fluor 405 | Abcam | ab175658 | Verdunning 1:250 |
| Antilichaam: Donker anti-muis IgG geconjugeerd aan Alexa Fluor 488 | Jackson ImmunoResearch | 715-547-003 | Verdunning 1:400 |
| Antilichaam: Donkey anti-muis IgG geconjugeerd aan Alexa Fluor 555 | ThermoFisher Scientific | A31570 | Verdunning 1:500 |
| Antilichaam: Donkey anti-muis IgG geconjugeerd aan Alexa Fluor 647 | Jackson ImmunoResearch | 715-605-151 | Verdunning 1:250 |
| Antilichaam: Donkie anti-cavia IgG geconjugeerd aan Alexa Fluor 405 | Jackson ImmunoResearch | 706-475-148 | Verdunning 1:250 |
| Antilichaam: Donker anti-cavia IgG geconjugeerd aan Alexa Fluor 555 | Sigma-Aldrich | SAB4600297-5OUL | Verdunning 1:500 |
| Antilichaam: Donkerie anti-cavia IgG geconjugeerd aan Alexa Fluor 647 | Jackson ImmunoResearch | 706-605-148 | Verdunning 1:250 |
| Antilichaam: Donkey anti-rabbit IgG geconjugeerd aan Alexa Fluor 405 | Abcam | ab175651 | Verdunning 1:250 |
| Antilichaam: Donkereis anti-konijn IgG geconjugeerd aan Alexa Fluor 555 | Invitrogen | A31572 | Verdunning 1:500 |
| Antilichaam: Donker anti-rat IgG geconjugeerd aan Alexa Fluor 555 | Abcam | Ab150154 | Verdunning 1:500 |
| Antilichaam: Donkereja anti-schaap IgG geconjugeerd met Alexa Fluor 488 | Jackson ImmunoResearch | 713-545-147 | Verdunning 1:400 |
| BD 1 ml spuit compleet met 25g x 16 mm naald x 120 | BD | 303175 | |
| Rundachtig Serumalbumine (BSA), 30% | Sigma-Aldrich | A7284-50ML | |
| Dekglas 18 x 18 mm | VWR | 631-0120 | |
| Dekglas 24 x 24 mm | VWR | 631-0126 | |
| Dubbelzijdige tape 19 mm x 33 m | Scotch | AMS12354 | |
| Vlieg: Canton S | BDSC | 64349 | |
| Vlieg: Optix-GAL4 | Kyoto | 104266 | |
| Vlieg: nls-GFP/CyO-YFP | BDSC/ Desplan lab | 4775 | |
| Flystuff Drosophila Ultimate Flypads | Genesee Scientific Corporation | 59-172B | |
| Ijsemmer met deksel, rond, 4L, blauw | Corning | 432123 | |
| Afbeelding (FIJI) | (National Institutes of Health, Bethesda, MD, VS) | Fiji/ImageJ2 versie 2.16.0/1.54p | |
| Kimtech Science Precision Wipes | Kimberly-Clark Professional | 05511 | |
| Laboratoriumsealingfilm | Parafilm M | PM-996 | |
| Microscooppreparaten | VWR | 8037/1 | |
| Minicentrifuge | VWR | 521-2848 | |
| Nagellak | Mumuso | 2023/11/05 | |
| Normaal geiten serum | Sigma-Aldrich | G9023 | |
| Verfkwast | Camlin | S-66 | |
| Paraformaldehyde (PFA) | Sigma | P6148 | |
| Petrischalen 100 mm x 15 mm | Falcon | 351029 | |
| Fosfaatgebufferde zoutoplossing (PBS) | Sigma | P5493 | |
| PYREX® 9 Depression Glass spotplaten | Corning | 7220-85 | |
| Rocker (laboratoriumopstelling) | Fisherbrand | 8861025 | |
| Safelock-buisjes 1,5 ml | Eppendorf | O219706H | |
| Schneider's insectenmedium | Sigma | S0146 | |
| Slowfade gold antifade | Invitrogen | S36936 | |
| Sylgard 184 siliconenelastomeer | Dow | 4019862 | |
| TritonX-100 | Sigma | 93426 | |
| Wolfraamnaalden 0,25 mm | Fine Science Tools | 10130-10 | |
| Wolfraamnaalden 0,5 mm | Fine Science Tools | 10130-20 | |
| UHU All Purpose Adhesive | UHU | 40815 | |
| Ultrafijne pincetten | WPI | 500235 | |
| Vectashield antifade monteermedium | Vector | H-1000 | |
| Vortexmixer | VWR | VM-3000 |
Referenties
- Nériec N, Desplan C. From the Eye to the Brain: Development of the Drosophila Visual System. Curr Top Dev Biol. 2016;116:247–71.
- Montell C. Drosophila visual transduction. Trends Neurosci. 2012;35(6):356–63.
- Currier TA, Pang MM, Clandinin TR. Visual processing in the fly, from photoreceptors to behavior. Genetics. 2023;224(2),1–28.
- Fischbach KF, Dittrich APM. The optic lobe of Drosophila melanogaster. I. A Golgi analysis of wild-type structure. Cell Tissue Res. 1989;258(3):441–75.
- Dorkenwald S, et al. Neuronal wiring diagram of an adult brain. Nature. 2024;634(8032):124–38.
- Matsliah A, et al. Neuronal “parts list” and wiring diagram for a visual system. bioRxiv: The Preprint Server for Biology. Preprint posted online April 2024.
- Younossi-Hartenstein A, Nassif C, Green P, Hartenstein V. Early neurogenesis of the Drosophila brain. J Comp Neurol. 1996;370(3):313–29.
- Zhang Y, Li X. Development of the Drosophila Optic Lobe. Cold Spring Harb Protoc. 2024;2024(3):108156.
- Apitz H, Salecker I. A Challenge of Numbers and Diversity: Neurogenesis in the Drosophila Optic Lobe. J Neurogenet. 2014;28(3-4):233–49.
- Egger B, Gold KS, Brand AH. Notch regulates the switch from symmetric to asymmetric neural stem cell division in the Drosophila optic lobe. Development. 2010;137(18):2981–7.
- Sato M, Yasugi T, Minami Y, Miura T, Nagayama M. Notch-mediated lateral inhibition regulates proneural wave propagation when combined with EGF-mediated reaction diffusion. Proc Natl Acad Sci U S A. 2016;113(35):E5153–62.
- Wang W, et al. Notch signaling regulates neuroepithelial stem cell maintenance and neuroblast formation in Drosophila optic lobe development. Dev Biol. 2011;350(2):414–28.
- Yasugi T, Sugie A, Umetsu D, Tabata T. Coordinated sequential action of EGFR and Notch signaling pathways regulates proneural wave progression in the Drosophila optic lobe. Development. 2010;137(19):3193–203.
- Bakshi A, Ben El Kadhi K, Desplan C. Decoding neuronal diversity: Mechanisms governing neural cell fate in Drosophila. Curr Opin Neurobiol. 2025;93.
- Holguera I, Desplan C. Neuronal specification in space and time. Science (1979). 2018;362(6411):176–80.
- Konstantinides N, et al. A complete temporal transcription factor series in the fly visual system. Nature. 2022;604(7905):316–22.
- Li X, et al. Temporal patterning of Drosophila medulla neuroblasts controls neural fates. Nature. 2013;498(7455):456–62.
- Suzuki T, Kaido M, Takayama R, Sato M. A temporal mechanism that produces neuronal diversity in the Drosophila visual center. Dev Biol. 2013;380(1):12–24.
- Chen YC, et al. Single-locus chromatin memory enables flexible spatial fate specification in the Drosophila visual system. bioRxiv. Published online August 21, 2026:2026.08.09.743789.
- Erclik T, et al. Integration of temporal and spatial patterning generates neural diversity. Nature. 2017;541(7637):365–70.
- Simon F, et al. Spatial, temporal and Notch determination of terminal selector expression controls neuronal cell fate in the Drosophila optic lobe. Nat Neurosci. 2026;29(5):1068–78.
- Bhattacharya A, Rao H, Sen SQ. Chromatin priming and Hunchback recruitment integrate spatial and temporal cues in Drosophila neuroblasts. eLife15:RP110150.
- Bostock MP, Prasad AR, Donoghue A, Fernandes VM. Photoreceptors generate neuronal diversity in their target field through a Hedgehog morphogen gradient in Drosophila. Elife. 2022;11:e78093.
- El-Danaf RN, et al. Morphological and functional convergence of visual projection neurons from diverse neurogenic origins in Drosophila. Nat Commun. 2025;16(1):1–15.
- Pinto-Teixeira F, et al. Development of Concurrent Retinotopic Maps in the Fly Motion Detection Circuit. Cell. 2018;173(2):485–98.
- Xu C, Ramos TB, Rogers EM, Reiser MB, Doe CQ. Homeodomain proteins hierarchically specify neuronal diversity and synaptic connectivity. Elife. 2023;12:RP90133.
- Arain U, Valentino P, Islam IM, Erclik T. Dissection, Immunohistochemistry and Mounting of Larval and Adult Drosophila Brains for Optic Lobe Visualization. J Vis Exp. 2021;(170):e61273.
- Zhang Y, Li X. Immunostaining of Drosophila Brains to Study Optic Lobe Development. Cold Spring Harb Protoc. 2024;2024(3):108157.
- Daul AL, Komori H, Lee CY. Immunofluorescent staining of Drosophila larval brain tissue. Cold Spring Harb Protoc. 2010;2010(7):pdb.prot5460.
- Sweeney ST, Hidalgo A, de Belle JS, Keshishian H. Dissection of adult Drosophila brains. Cold Spring Harb Protoc. 2011;2011(12):1472–4.
- Tito AJ, Cheema S, Jiang M, Zhang S. A Simple One-step Dissection Protocol for Whole-mount Preparation of Adult Drosophila Brains. J Vis Exp. 2016;(118):55128.
- Wu JS, Luo L. A protocol for dissecting Drosophila melanogaster brains for live imaging or immunostaining. Nat Protoc. 2006;1(4):2110–5.
Herprints en machtigingen
Dit artikel is gepubliceerd
Video binnenkort beschikbaar